Kabızlık, Parkinson hastalığının (PH) yaygın bir prodromal özelliğidir ve genellikle tanıdan yıllar önce ortaya çıkar. Bu çalışma, Drosophila melanogaster'de kabızlığı ölçmek için önerilen bir yöntemi doğruladı ve monogenik PD'nin farklı sinek modellerindeki eksiklikler doğrulandı.
Yöntem makalesi
Kabızlık Testi Kullanılarak Monogenik Parkinson Hastalığının Drosophila Modellerinde Bağırsak Geçiş Kusurları
Bu makalede
Özet
Özet
Parkinson hastalığı (PH) yaygın bir nörodejeneratif motor bozukluktur ve sıklıkla çeşitli non-motor semptomlar eşlik eder. İkincisi arasında, kabızlık da dahil olmak üzere gastrointestinal problemler, genellikle hareket güçlüğünün ortaya çıkmasından yıllar önce ve PH tanısı konmadan önce ortaya çıkar. Yakın zamanda yapılan bir çalışma, vahşi tip insan alfa-sinükleinini ifade eden bir PD sinek modelinde kabızlığı ölçmek için bir yöntem önerdi. Bu çalışmada, bu yöntemin uygulanabilirliğini inceledik ve diğer genetik sinek PD modellerinin de aynı şekilde kabızlığa yol açıp açmadığını test ettik. Otozomal dominant ve resesif PD modellerinde kabızlık seviyesini ölçmek için üç farklı mutant insan alfa-sinüklein eksprese eden Drosophila çizgileri ve Pink1 ve Parkin eksikliği olan sinekler dahil olmak üzere mevcut sinek hatları kullanıldı. Bu sinekler ve bunlara karşılık gelen kontroller, mavi dışkı lekelerini indüklemek için deneyden bir gün önce mavi renkli yiyeceklere yerleştirildi. Deney gününde, bu sinekler standart mısır ununa aktarıldı. Mavi dışkı lekelerinin toplam dışkı lekelerine yüzdesi her 90 dakikada bir kaydedildi ve hesaplandı. Farklı sinek PD modelleri, ilgili kontrol sineklerine kıyasla mavi renkli yiyeceklerin daha yavaş veya eksik atıldığını gösterir. Bu nedenle, kabızlığı ölçmek için daha önce önerilen bir yöntem doğrulandı ve farklı genetik PD formlarının çeşitli sinek modellerine uygulandı.
Giriş
Parkinson hastalığı (PH), temel olarak bradikinezi, rijidite ve tremorun kardinal tanısal belirtileri dahil olmak üzere motor disfonksiyon ile karakterize nörodejeneratif bir hastalıktır. PH en iyi motor belirtileri ile bilinmesine rağmen, depresyon, ağrı, uyku bozuklukları ve kabızlık gibi motor olmayan semptomlar yaygındır 1,2. Genellikle, bu motor olmayan semptomlar hastalık seyrinin erken dönemlerinde ortaya çıkar ve motor semptomlardan birkaç yıl önce ortaya çıkabilir3. Hastalığın ilk aşamasında bu motor olmayan özelliklerin tanınması, PH'nin erken tanısında kritik olabilir ve potansiyel olarak daha zamanında müdahale ve hastalık yönetimini kolaylaştırabilir.
Kabızlık ve bağırsak motilitesindeki değişiklikler PH'de sıklıkla bildirilen motor olmayan semptomlardır ve genellikle motor semptomların başlamasından çok önce ortaya çıkar 3,4. Ayrıca, PH ilerlemesi üzerine şiddeti ve sıklığı artar5. Bununla birlikte, kabızlık paternleri ve mekanizmaları hakkındaki anlayışımız sınırlı kalmaktadır. Bu nedenle, PH'ye bağlı kabızlığın erken teşhisi, terapötik müdahalelerin hastalığın ilerlemesini yavaşlatmada daha etkili olabileceği bir aşamada PH teşhisine yardımcı olabilir. Önemine rağmen, PH'de kabızlığa neden olan altta yatan mekanizmaların anlaşılması, kısmen uygun deneysel modellerin ve tasarımın olmaması nedeniyle sınırlı kalmaktadır. İnsan vahşi tip alfa-sinükleinin aşırı ekspresyonu kullanılarak Drosophila melanogaster'de kabızlığın incelenmesindeki son gelişmeler, bu erken motor olmayan semptomun altında yatan mekanizmaları araştırmak için değerli bir araç sağlar6.
Alfa-sinükleini kodlayan SNCA, PD7'nin ilk tanımlanan nedenini temsil eder. SNCA'da hem gen çoğalması (duplikasyon ve triplikasyon) hem de nokta mutasyonları PD8'in otozomal dominant kalıtımına yol açar. Özellikle, kabızlık, SNCA mutasyonlarını taşıyan hastaların% 90'ını etkiler5. Ek olarak, otozomal dominant PD8 formlarına da neden olan VPS35 de dahil olmak üzere, mutasyona uğradığında PD'ye neden olan birkaç başka gen tanımlanmıştır. PINK1 ve Parkin gibi diğer genler, mutasyona uğradığında otozomal resesif PD'ye neden olur9. Motor olmayan semptomlar da PH'nin bu diğer genetik formlarında ortaya çıkar; Bununla birlikte, rapor edilen veriler seyrektir ve bu nedenle altta yatan mekanizmaları sonuçlandırmak veya araştırmak zordur10,11.
PD için Drosophila melanogaster12 dahil olmak üzere çeşitli hayvan modelleri oluşturulmuştur. Drosophila , SNCA genini içermemesine rağmen, genin vahşi tip ve mutant formlarının aşırı ekspresyonu, motor semptomlar da dahil olmak üzere Parkinson fenotiplerini indükler13. Ek olarak, PD'ye bağlı mutant vps35, pink1 ve parkin sinekleri, PD12 ile ilişkili olarak ilgili mutant genlerin etkisini incelemek için iyi kurulmuş modellerdir. Ayrıca, baskın ve resesif formlar da dahil olmak üzere farklı Drosophila PH modellerinde kabızlığı ölçme yeteneği, gastrointestinal disfonksiyonun daha derinlemesine bir analizine ve dolayısıyla PH ile ilişkili kabızlıkta yer alan yolların daha iyi anlaşılmasına olanak tanır.
Burada, kabızlığı ölçmek için yakın zamanda önerilen yöntemin fizibilitesi, farklı genetik PD modelleri kullanılarakdeğerlendirildi ve doğrulandı 6 . Bu yöntemin uygulamasını diğer genetik PD modellerine genişleterek ve ayarlamalar yaparak, bu yöntemin kabızlığı veya değişmiş bağırsak motilitesini ölçmek için genel bir test olarak uygulanabilirliğini onaylıyoruz ve PD'nin kabızlığının altında yatan moleküler mekanizmalar hakkında bilgi edinmek için değiştirici ekranlar gerçekleştirme olasılığını onaylıyoruz.
Protokol
Bu testte on günlük erkek sinekler kullanıldı. SNCA'nın aşırı ekspresyonu için, her yerde bulunan sürücü DaughterlessGal4 kullanıldı.
Bu tahlilde kullanılan sinekler:
W1118;; SNCA p.A53T/DaGal4 ve kontrolü W1118;; SNCA sayfa A53T
W1118;; SNCA p.A30P/DaGal4 ve kontrolü W1118;; SNCA sayfa A30P
W1118;; SNCA p.V15A/DaGal4 ve kontrolü W1118;; SNCA p.V15A
W1118;; Vps35D650N/DaGal4 ve kontrolü W1118;; vps35D650N Serisi
w pembe1B9;; ve kontrolleri w pembe1RV;;
W1118;; parkD1/D21 ve kontrolleri w1118;; parkkaravanı
SNCA p.A53T, SNCA p.A30P, w*;; P(EP)park1, w*;; parkΔ21, Vps35D650N ve DaGal4 ticari olarak elde edilmiştir (bkz. Malzeme Tablosu). w pink1B9 null mutantlar ve kontroller (w pink1RV) Jeehye Park ve Jongkyeong Chung (Kore İleri Bilim ve Teknoloji Enstitüsü)14 tarafından nazikçe sağlandı. SNCA p.V15A sinekleri daha önce15 oluşturuldu. Bu çalışmada kullanılan reaktifler ve ekipmanlar Malzeme Tablosunda listelenmiştir.
1. Mavi yiyeceğin hazırlanması
- Taze standart mısır unu sineği ortamı hazırlayın ve sıcak ve sıvı tutun.
NOT: Önceden hazırlanmış bir sinek ortamı kullanılabilir, ancak ortamı sıvı hale getirmek için ısıtılması gerekir. Standart mısır unu, 50 g mısır unu, 7 g maya, 7 g agar, 13.5 g dekstroz, 10 mL etanol (%100), 1.1 g Metol-4-hidroksibenzoat, 55 g melas ve 1 L sinek ortamı için 4.8 mL propiyonik asitten oluşur. - Mavi gıda boyasını damıtılmış su ile 1:1 oranında (h/h) karıştırın.
- Mavi gıda karışımını standart mısır unu ortamına ekleyerek mavi gıda ile doyurun ve homojen bir mavi renk elde edin.
NOT: Bu çalışmada 1:100 oranı kullanılmıştır. - Mavi yiyeceği, alt kısmı kaplanacak şekilde bir Pasteur pipeti kullanarak büyük gıda şişelerine dağıtın ve katılaşmaları için havayla kurumaya bırakın.
- Standart mısır unu ortamı ile aynı sayıda gıda şişesi yapın.
- Nem ve kontaminasyon birikimini önlemek için kuruturken gıda şişelerini ince bir kağıt havluyla örtün.
2. Testin hazırlanması
- Boş yiyecek şişelerine ıslak bir Whatman kağıdı yerleştirin.
NOT: Sinekler mavi ortamlı şişelere aktarılırken Whatman kağıdını dibe yapışacak şekilde ıslattığınızdan emin olun. - Her şişeye 15-20 sinek ekleyin ve 1 saat bekletin.
NOT: Anestezi uygulayan sinekler, doğru genotipe sahip sineklerin seçilmesini sağlamıştır. Daha sonra, sinekler bir fırça ile bir şişede kaydırıldı ve on gün yaşlandırıldı. Sineklerin transferi, sineklerin bir şişeden diğerine dikkatli bir şekilde çevrilmesi ve sineklerin kaçmasını önlemek için tıpalar kullanılmasıyla gerçekleştirilir. - Sinekleri mavi ortamı içeren şişelere aktarın ve gece boyunca 25 ° C'de bir inkübatörde bırakın.
3. Kabızlık testinin yürütülmesi
- Ertesi sabah, sinekleri standart mısır unu besiyeri olan şişelere aktarın ve 90 dakika boyunca inkübatöre geri koyun.
NOT: Şişelerdeki tüm sineklerin karınlarının mavi olup olmadığı, mikroskop altına yerleştirilerek kontrol edilebilir. - 90 dakika sonra, mavi ve renksiz, opak noktaların sayısını sayın, bunları renkli bir kalemle işaretleyin, kaydedin ve sinekleri kuluçka makinesine geri koyun (Şekil 1).
NOT: Önceden sayılan noktaların işaretlenmesi, tekrarlanan sayımı önler. Ayrıca, yiyecek veya flakon tıkacı üzerindeki noktalar göz ardı edildi. - Dışkı noktalarının zaman seyrini elde etmek için adım 4.2'yi aynı sineklerle dört kez daha tekrarlayın. Her seferinde, önceki turların tekrar tekrar sayılmasını önlemek için farklı renkli bir işaretleyici kullanıldı.
4. Analiz
- Her zaman noktası için mavi noktaların toplam nokta sayısına (mavi ve opak noktalar) göre yüzdelerini hesaplayın.
- Farklı zaman noktalarındaki mavi noktaların yüzdesini kullanarak verileri bir grafikte çizin ve GraphPad'deki 'eğri altındaki alan' analizi aracılığıyla eğrinin altındaki alan hesaplandı ve çizildi.
- Welch düzeltmesi16 ile eşleşmemiş bir t-testi gerçekleştirmek için GraphPad Prism'deki verileri analiz edin.
NOT: Welch'in düzeltmesi, eşit standart sapmalar tüm popülasyonlarda test edilemediği için dahil edildi.
Sonuçlar
Sineklerdekabızlığı ölçmek için daha önce sunulan bir yöntemde küçük ayarlamalar yapıldı 7 ve farklı genetik PD ile ilişkili sinek modellerinde bağırsak fonksiyonunu test etmek için. Sineklerin mavi renkli besiyeri üzerinde gece boyunca kuluçkaya yatırılması, mavi görünen sinek karınları (Şekil 2) ve sinek besin şişesi üzerinde mavi lekeler bırakan dışkı maddesi (Şekil 2) ile sonuçlandı. Zamanla, mavi karınlar normal sarımsı renkli karınlara geri döndü (Şekil 2). Ek olarak, mavi dışkı lekeleri azaldı ve artan sarı, opak lekeler gözlendi (Şekil 2). Mavi lekelerden sarı lekelere bu geçiş, bağırsak hareketliliği veya kabızlık seviyesi hakkında bir fikir verir. Kontrol sineklerinde geçiş 7 saat 30 dakika sonra tamamlanırken, PH ile ilişkili sineklerde mavi renkli ortamın bu şekilde çıkarılması daha yavaş bir hızda gerçekleşmiştir (Şekil 2).
Daha önce, yabani tip alfa-sinüklein7'yi eksprese eden 10 günlük sineklerde mavi ortamın gecikmeli klerensi tanımlanmıştı, bu da kontrol sineklerine kıyasla bu sineklerde mevcut olan bağırsak motilitesindeki değişikliklere bağlı bir kabızlık veya gecikmiş klerens seviyesini düşündürüyordu. SNCA'nın duplikasyonlarına veya üçlülerine ek olarak, SNCA'da PD ile bağlantılı birkaç patojenik yanlış anlamlı varyant tanımlanmıştır ve SNCA'da üç yaygın patojenik yanlış anlamlı varyantı test ettik. Mutant alfa-sinükleinin ekspresyonu (p.A30P, p.A53T ve p.V15A), 7 saat 30 dakika içinde mavi ortamın eksik bir klerensine neden oldu, bu da bu sineklerde kontrol sineklerine kıyasla kabızlığın varlığını düşündürdü.
İlginç bir şekilde, alfa-sinüklein ekspresyonu VPS35 protein seviyeleriniazaltır 17. VPS35, retromerin bir alt birimidir ve mutasyona uğradığında PD 9,18,19'a neden olur. Mutant vps35 eksprese eden sineklerde kontrol sineklerine kıyasla artmış kabızlık gözlenmiştir (Şekil 4).
Pink1 ve Parkin eksikliği olan sinekler, mavi ortamın gecikmeli temizlenmesini gösterir; ancak 7 saat 30 dakika sonra bu mutant sineklerde artık mavi dışkı lekesi tespit edilmemiştir (Şekil 5).
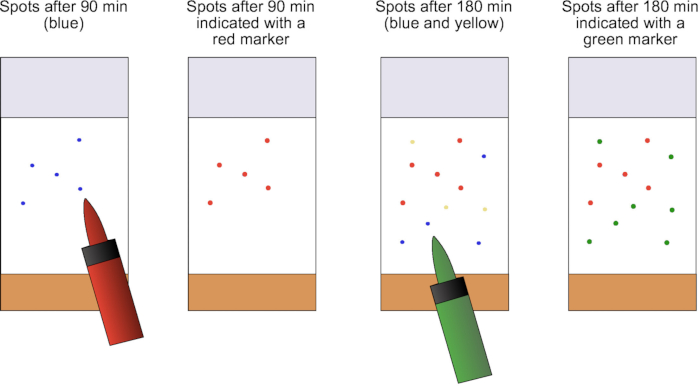
Şekil 1: Renkli işaretleyicilerle sayma işleminin şematik gösterimi. 90 dakika sonra, dışkı noktaları sayıldı ve bir sonraki turda yeniden sayılmalarını önlemek için renkli bir işaretleyici ile gösterildi. Bir sonraki sayım turu sırasında ek dışkı lekelerini belirtmek için başka bir renk kullanıldı. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
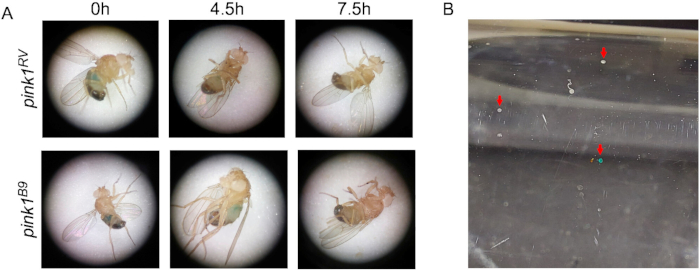
Şekil 2: Mavi ortam, mavi göbek ve mavi dışkı lekelerine neden olur. (A) 0 sa, 4 sa 30 dk ve 7 sa 30 dk zaman noktalarında kontrol sineklerinin (pembe1RV) ve pembe1-mutant sineklerin karınlarının görüntüleri mavi rengin solduğunu göstermektedir. (B) Sinek gıda şişesi üzerindeki mavi ve sarı, opak dışkı lekeleri kırmızı oklarla gösterilir. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
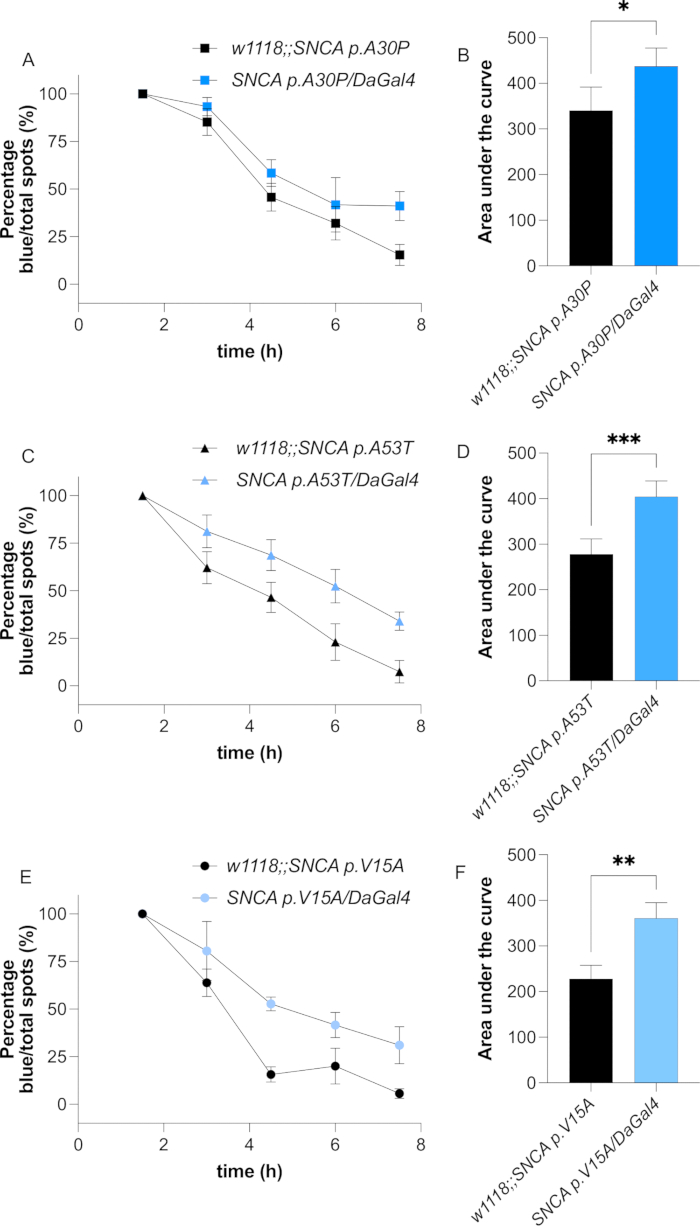
Şekil 3: Mutant alfa-sinüklein ekspresyonu kabızlığa neden olur. SNCA p.A30P (A), SNCA p.A53T (C) ve SNCA p.V15A (E) ve bunların kontrollerini aşırı eksprese eden sineklerde zaman içinde mavi dışkı lekelerinin yüzdesi. Eğrinin altındaki ilişkili alan (B,D,F) sunulmuştur. Veriler ortalama ve standart sapmadır. n ≥ şişe başına 15-20 sinek ile 3 şişe. Welch T-testi yapıldı; *: p < 0.05; **: p < 0.01; : p < 0.001. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
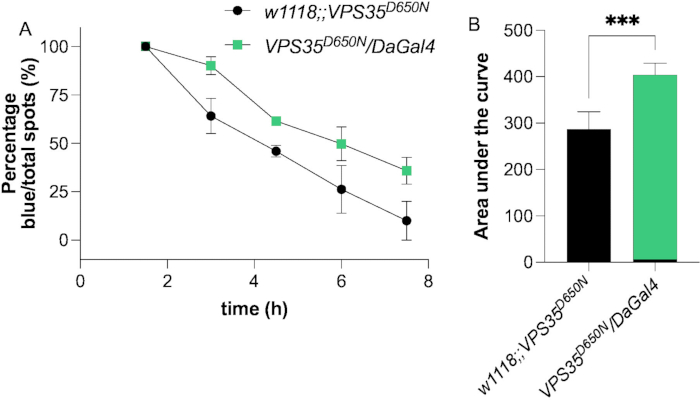
Şekil 4: Mutant vps35'in ekspresyonu kabızlığa neden olur. (A) PD'ye bağlı mutant vps35D650N'yi ve kontrolünü aşırı eksprese eden sineklerde zaman içinde mavi dışkı lekelerinin yüzdesi. (B) Eğrinin altındaki alan sunulur. Veriler ortalama ve standart sapmadır. n = flakon başına 15-20 sinek ile 3 flakon. Welch T-testi yapıldı; : p < 0.001. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
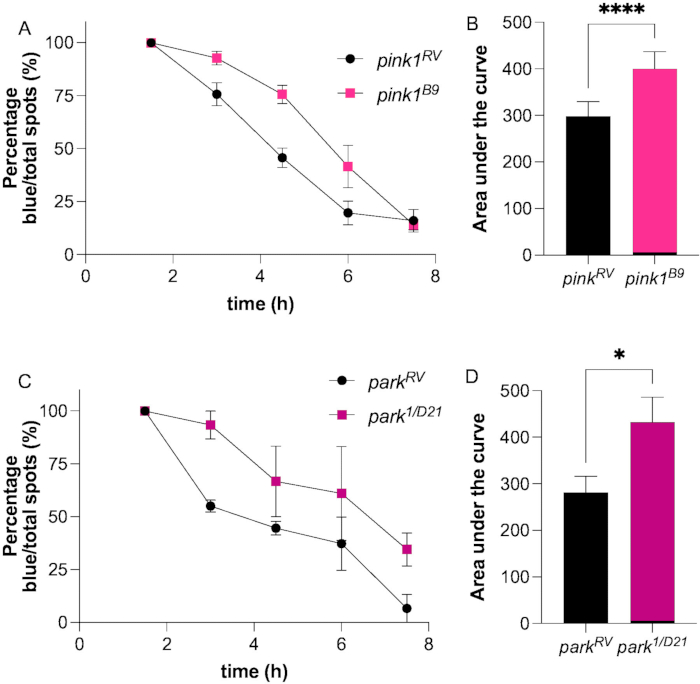
Şekil 5: Pink1 ve Parkin eksikliği gecikmiş dışkı klerensine neden olur. Pembe1- (A) ve Parkin eksikliği olan (C) ve ilgili kontrol sineklerinde zaman içinde mavi dışkı lekelerinin yüzdesi. Eğrinin (B,D) altındaki ilişkili alan sunulmuştur. Veri, standart sapma ile ortalamadır. n ≥ şişe başına 15-20 sinek ile 3 şişe. Welch T-testi yapıldı; *: p < 0.05; : p < 0.0001. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Tartışma
Son zamanlarda, Drosophila melanogaster'de kabızlığı ölçmek için bir yöntem önerildi. Bu yöntemin uygulanmasıyla, vahşi tip alfa-sinüklein7 eksprese eden sineklerde kabızlık veya değişmiş bağırsak motilitesi gözlenmiştir. Bu yöntem çeşitli değişikliklerle doğrulandı ve test edilen tüm genetik PD modellerinde kabızlık tespit edildi.
Yöntemin orijinal açıklamasıyla karşılaştırıldığında, fizibiliteyi ve sağlamlığı artırmak için çeşitli değişiklikler dahil edildi. Mavi ortam doygunluğundaki değişiklikleri önlemek için, bir parti mavi ortam hazırlandı ve gerekli sayıda gıda şişesine bölündü. Ayrıca, sinekleri mavi ortama eklemeden önce, kısa bir süre yiyeceklerden mahrum bırakıldılar, sadece suya erişim sağladılar. Bu adım, mavi ortamın alımını teşvik etmek için eklendi. Bu ek adım olmadan, tüm sinekler temsili sonuçlar elde etmek için kritik bir başlangıç noktası olan açık mavi bir göbek göstermedi. Son olarak, birkaç PD sinek modeli 13,14,20 patlama hassasiyeti seviyesi gösterir. Bu nedenle, bu duyarlılığın dışkı çıkışı üzerindeki herhangi bir etkisini önlemek için sinekler her sayım adımı sırasında aktarılmadı. Bununla birlikte, çift sayımı önlemek için noktaları belirtmek için farklı renkli işaretler kullanıldı.
Orijinal açıklamaya benzer şekilde, sineklerin öğleden sonra daha az sıklıkta dışkıladığı da gözlemlendi. Bununla birlikte, hem kontrol hem de mutant sinekler için durum böyle olduğundan, bu, lekelerin kaydedilmesinde anormalliklere yol açmadı. Ayrıca, her bir zaman noktasında sayılacak yeterli dışkı noktasına sahip olmak, sağlam sonuçlar elde etmenin anahtarıdır. Bu nedenle, flakon başına en az on beş sinek önerilir7.
Orijinal el yazmasında 10 günlük sineklerde kabızlık gözlenmiş, ancak 1 günlük sineklerde gözlenmemiştir. Bu nedenle, bu tahlilde, on günlük sineklerde kabızlık testi yapıldı ve test edilen tüm PD sinek modellerinde kabızlık veya değişmiş bağırsak motilitesi gözlendi. Daha önceki hareket çalışmaları, kabızlığın alfa-sinüklein eksprese eden sineklerde motor işlev bozukluğundan önce geldiğini ve uçuş bozukluklarının sadece16 yaşında üç haftada belirgin hale geldiğini ortaya koydu. Bu zamansal semptom dizisi, gastrointestinal sorunların genellikle motor eksikliklerden önce ortaya çıktığı PH hastalarında gözlenen ilerlemeyi yansıtır. Alfa-sinüklein modellerinin aksine, pembe1 veya parkin mutant sinekler, eklosiyon21'den sonraki ilk gün kadar erken bir tarihte bozulma gösterir. Bu nedenle, bağırsak geçiş kusurlarının bu erken zaman noktasında ortaya çıkıp çıkmadığını araştırmak, bu genetik modellerde motor olmayan semptomların ilerlemesi hakkında değerli bilgiler sağlayacaktır. Bu nedenle, altta yatan biyolojiyi daha iyi anlamak için daha derinlemesine deneyler yapılmalıdır.
Burada açıklanan test, gastrointestinal motilite ve kabızlık fenotiplerinin kantitatif değerlendirmesini kolaylaştırır, ancak dışkı kıvamı, içerik, renklenme veya morfoloji gibi parametreleri değerlendiremez. Daha önce, Drosophila modellerinde 22,23,24 yerleşik metodolojiler kullanılarak renk ve morfolojinin değerlendirildiği dışkı çıktısı ölçülüyordu. Bununla birlikte, bu tahlil, burada açıklanan protokole kıyasla farklı teknik ve kaynak hususları sunan özel ekipman (örneğin, şeffaflık tarayıcıları) ve özel analitik yazılım gerektirir. Bununla birlikte, bu test Pink122,23 eksikliği olan sineklerde gastrointestinal kusurları göstermektedir.
Gastrointestinal disfonksiyonlar, otizm spektrum bozukluğu, Alzheimer hastalığı ve multipl skleroz 25,26,27,28 dahil olmak üzere çoklu nörolojik ve nörodejeneratif bozukluklarda komorbid belirtiler olarak kabul edilir ve bunun için Drosophila melanogaster mekanik temelleri araştırmak için izlenebilir bir model organizma olarak hizmet eder. Drosophila'da bağırsak hareketliliği ve kabızlığı incelemek için oluşturulan metodolojik çerçeve bu hastalıklara göre tahmin edilebilir.
Sonuç olarak, bu çalışma sineklerde kabızlığı ölçmek için daha önce sunulan uygulanabilir ve sağlam bir yöntemi doğruladı. Bu test, kabızlığın, motor özelliklerin tezahürü ortaya çıkmadan önce genetik olarak tanımlanmış risk altındaki sinekleri inceleme fırsatı sundukları için, kabızlığı incelemek için özellikle uygun olan çoklu genetik Drosophila PD modellerinde mevcut olduğunu göstermektedir. Ayrıca, Drosophila'da bağırsak motilite düzensizliklerini ortaya çıkaran diğer hastalık modelleri, ilaç taramasının yanı sıra bununla da değerlendirilebilir.
Açıklamalar
C. K, Centogene, Takeda, Biogen ve Lundbeck Vakfı için danışman olarak görev yaptı, Bial'den konuşmacı onur ödülü aldı ve DFG, MJFF ve ASAP'tan araştırma fonu aldı.
Teşekkürler
Hiç kimse.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Bacto Agar | Becton, Dickinson ve şirket | 214010 | |
| Ceapran fişleri | Greiner Bio-One | 330070 | |
| Mısır unu | Dr. Oetker GmbH | ||
| Dekstroz | Sigma-Aldrich | D9434-1KG | |
| Drosophila kabı | Greiner Bio-One | 217101 | |
| Etanol (%100) | J.T. Baker | BAK8025 2500 | |
| Filterpapier Selüloz, Whatman (Sınıf 3) | Sigma-Aldrich | WHA1003185 | |
| GraphPad Prizma | GraphPad | ||
| Metil-4-hidroksibenzoat | Sigma-Aldrich | H5501-100G | |
| Pekmez | Rapunzel Naturkost GmbH | ||
| kalıcı renkli işaretleyici | Stadtler | 11-348 | |
| Propiyonik asit | Thermo Fisher Scientific Inc. | ||
| Kraliyet Mavisi Azul gerçek buzlanma rengi | Wilton Lebensmittelfarben | ||
| Stereo mikroskop | Nikon | ||
| Maya | Algist Bruggeman | 1278 | |
| Drosophila hisse senetleri | |||
| DaGal4 | Bloomington Stok Merkezi | 95282 | |
| park< sup>D1/D21 | Jeehye Parkı ve Jongkyeong Chung | ||
| parkıRV | Jeehye Parkı ve Jongkyeong Chung | ||
| SNCA p.A53T | Bloomington Stok Merkezi | 8148 | |
| SNCA p.A30P | Bloomington Stok Merkezi | 8147 | |
| SNCA p.V15A | daha önce laboratuvarda | ||
| Vps35D650N | Bloomington Stok Merkezi | 91646 | |
| w pembe1B9 | Jeehye Parkı ve Jongkyeong Chung | ||
| w pink1RV | Jeehye Parkı ve Jongkyeong Chung | ||
| w1118 | Bloomington Stok Merkezi | 3605 |
Kaynaklar
- Fanciulli, A., et al. Diagnosis and treatment of autonomic failure, pain and sleep disturbances in Parkinson's disease: Guideline "Parkinson's disease" of the German Society of Neurology. J Neurol. 272 (1), 1-32 (2025).
- Kasten, M., Marras, C., Klein, C. Nonmotor signs in genetic forms of Parkinson's disease. Int Rev Neurobiol. 133, 129-178 (2017).
- Bloem, B. R., Okun, M. S., Klein, C. Parkinson's disease. Lancet. 397 (10291), 2284-2303 (2021).
- Higinbotham, A. S., Kilbane, C. W. The gastrointestinal tract and Parkinson's disease. Front Cell Infect Microbiol. 13, 1158986(2023).
- Yuan, X. Y., Chen, Y. S., Liu, Z. Relationship among Parkinson's disease, constipation, microbes, and microbiological therapy. World J Gastroenterol. 30 (3), 225-237 (2024).
- Sodders, M. J., Shen, M., Olsen, A. L. Measuring constipation in a Drosophila model of Parkinson's disease. J Vis Exp. (199), e65966(2023).
- Spillantini, M. G., et al. Alpha-synuclein in Lewy bodies. Nature. 388 (6645), 839-840 (1997).
- Trinh, J., et al. Genotype-phenotype relations for the Parkinson's disease genes SNCA, LRRK2, VPS35: MDSGene systematic review. Mov Disord. 33 (12), 1857-1870 (2018).
- Kasten, M., et al. Genotype-phenotype relations for the Parkinson's disease genes Parkin, PINK1, DJ1: MDSGene systematic review. Mov Disord. 33 (5), 733-741 (2018).
- Deutschländer, A., Ross, O. A., Wszolek, Z. K. VPS35-related Parkinson disease. GeneReviews. , https://www.ncbi.nlm.nih.gov/books/NBK447258/ (2023).
- Wasner, K., Grünewald, A., Klein, C. Parkin-linked Parkinson's disease: From clinical insights to pathogenic mechanisms and novel therapeutic approaches. Neurosci Res. 159, 34-39 (2020).
- Vos, M., Klein, C. The importance of Drosophila melanogaster research to uncover cellular pathways underlying Parkinson's disease. Cells. 10 (3), 579(2021).
- Feany, M. B., Bender, W. W. A Drosophila model of Parkinson's disease. Nature. 404 (6776), 394-398 (2000).
- Park, J., et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 441 (7097), 1157-1161 (2006).
- Diaw, S. H., et al. Characterization of the pathogenic α-synuclein variant V15A in Parkinson's disease. NPJ Parkinsons Dis. 9 (1), 148(2023).
- Ruxton, G. D. The unequal variance t-test is an underused alternative to Student's t-test and the Mann-Whitney U test. Behav Ecol. 17 (4), 688-690 (2006).
- Lin, G., et al. Phospholipase PLA2G6, a Parkinsonism-associated gene, affects Vps26 and Vps35, retromer function, and ceramide levels, similar to α-synuclein gain. Cell Metab. 28 (4), 605-618.e6 (2018).
- Mandik, F., Vos, M. Neurodegenerative disorders: Spotlight on sphingolipids. Int J Mol Sci. 5 (21), ijms222111998(2021).
- Vos, M., Klein, C., Hicks, A. A. Role of ceramides and sphingolipids in Parkinson's disease. J Mol Biol. 435 (12), 168000(2023).
- Clark, I. E., et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 441 (7097), 1162-1166 (2006).
- Vos, M., et al. Vitamin K2 is a mitochondrial electron carrier that rescues pink1 deficiency. Science. 336, 1306-1310 (2012).
- Fedele, G., et al. Suppression of intestinal dysfunction in a Drosophila model of Parkinson's disease is neuroprotective. Nat Aging. 2 (4), 317-331 (2022).
- Popovic, R., et al. Blocking dPerk in the intestine suppresses neurodegeneration in a Drosophila model of Parkinson's disease. Cell Death Dis. 14 (3), 1-9 (2023).
- Wayland, M. T., et al. Spotting the differences: Probing host/microbiota interactions with a dedicated software tool for the analysis of faecal outputs in Drosophila. J Insect Physiol. 69, 126-135 (2014).
- Heston, M. B., et al. Gut inflammation associated with age and Alzheimer's disease pathology: A human cohort study. Sci Rep. 13 (1), 1-12 (2023).
- Levinthal, D. J., et al. Adding to the burden: Gastrointestinal symptoms and syndromes in multiple sclerosis. Mult Scler Int. 2013, 319201(2013).
- Sorboni, S. G., et al. A comprehensive review on the role of the gut microbiome in human neurological disorders. Clin Microbiol Rev. 35 (1), e0033820(2022).
- Salim, S., et al. The gut-microbiota-brain axis in autism: What Drosophila models can offer. J Neurodev Disord. 13 (1), 37(2021).
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında