Bu makale, sığır teka ve granüloza hücrelerinin bir ko-kültür modelini sunmaktadır. Bu yöntem, folikül içindeki somatik hücreler arasında parakrin iletişim ve substrat taşınması çalışmasına odaklanan analizler için güvenilir bir temel oluşturma potansiyeline sahiptir.
Yöntem makalesi
Sığır Yumurtalığındaki Granüloza-Teka Hücre Etkileşimlerini Anlamak için Modifiye Edilmiş Bir Ko-Kültür Sistemi
Bu makalede
Özet
Özet
Granüloza (GC'ler) ve teka hücrelerinin (TC'ler) güvenilir bir ko-kültürü, sığır yumurtalık folikülündeki her iki hücre bölmesi arasındaki etkileşimlerin, sinyal yollarının ve substrat değişiminin daha kapsamlı bir şekilde anlaşılmasını kolaylaştırma potansiyeline sahiptir. Ticari olarak temin edilebilen hücre kültürü ekleri kullanılarak, sığır GC'leri ve TC'lerinin tekrarlanabilir bir ortak kültür modeli oluşturulmuştur. Birincil teka ve granüloza hücrelerinin, hücre hatlarına kıyasla ek membrana bağlanmak için çok daha fazla zamana ihtiyaç duyduğu gözlemlendi. Başlangıçta, TC'ler, ortam sızıntısını önlemek için bir aşılama kabı görevi gören kesik bir tüp ile ters çevrilmiş ekleme membranı üzerine ekildi. 72 saatlik bir inkübasyon periyodunun ardından, ek ters çevrildi ve GC'lerin membranın karşı tarafında kültürlenmesine izin verildi. Bu ortak kültür daha sonra 37 °C'de ve% 5 CO2'de 6 günlük ek bir inkübasyona tabi tutuldu ve her gün ortam değişimi yapıldı. İşaretleyici genlerin ekspresyonu, hücre tipine özgü kalıpları gösterdi, CYP17A1 TC'lerde oldukça bol ve GC'lerde eksprese edilmedi. Tersine, CYP19A1 GC'lerde yüksek seviyeler ve TC'lerde sadece düşük seviyeler gösterdi. Hormon analizi, östradiol sentezi ile kanıtlandığı gibi, fizyolojik bir ko-kültür sisteminin varlığını destekledi. Bu modifiye edilmiş ko-kültür modeli, folikülün somatik hücreleri arasında parakrin sinyalleme ve substrat taşınmasına ilişkin tekrarlanabilir çalışmaları destekler.
Giriş
Folikülogenez sırasında, luteinize edici hormondaki (LH) bir artış, yumurtalıkta bir dizi fizyolojik değişikliği tetikler ve sonuçta yumurtlama sırasında olgun bir oositin salınmasına yol açar 1,2. Bu süreç, oosit olgunlaşması için gerekli desteği sağlayan ve uygun yumurtlama fonksiyonunu sağlayan foliküler somatik hücreler tarafından sıkı bir şekilde düzenlenir3. Folikül, iki tip steroidojenik somatik hücreden, bir iç granüloza hücresi tabakasından (GC'ler) ve bir dış teka hücresi tabakasından (TC'ler) oluşur. Bunlar arasında, GC'ler LH dalgalanmasını takiben en belirgin morfolojik ve fonksiyonel değişikliklere uğrar ve foliküler gelişimin son aşamalarını düzenlemedeki kritik rollerini vurgular4. Sonuç olarak, GC'ler folikülogenezi, yumurtlamayı ve luteinizasyonu etkileyebilecek faktörlerin analizinde büyük ilgi görmektedir.
Östradiol-aktif durumu taklit eden sığır GC'lerinin bir hücre kültürü modeli daha önce 5,6,7,8,9,10,11 olarak belirlenmişti. Bu serumsuz kültür modeli, GC fizyolojisinin güvenilir bir analizine ve sinyal yollarında, gen regülasyonunda ve hormon sentezinde olası efektör analizlerine izin verir 12,13,14. Bununla birlikte, 2 hücreli-2-gonadotropin hipotezi15 tarafından vurgulandığı gibi, folikül yapısı çok daha karmaşıktır. Bu, steroid sentezinin iki katman arasında bölümlere ayrılması bağlamında hücre tiplerinin bağımlılığının ve birbirine bağlı doğasının altını çizmektedir.
Bir dizi çalışma, daha önce kurulmuş GC mono-kültür sistemlerine benzer TC kültür modellerini tanımlamıştır 16,17,18. Bununla birlikte, her iki hücre popülasyonunun da GC'lerin TC'lere 19,20,21 oranında 4:1 oranında tek bir tabakta yetiştirildiği domuz teka ve granüloza hücrelerinin bir ko-kültür sistemi rapor edilmiştir. Bu modelde, granüloza ve teka hücreleri arasında fonksiyonel bir sistem ve etkileşim olduğu gösterilebilir, bu da ko-kültür sisteminde mono-kültüre göre daha yüksek miktarda estradiol ortaya çıkarır. Bununla birlikte, her iki hücre tipi de farklı şekilde etkilenebileceğinden, bu modelin granüloza ve teka hücreleri arasındaki etkileşimi ve substrat değişimini yeterince analiz edemediğine dikkat edilmelidir. Bu nedenle, GC'lerin ve TC'lerin moleküler seviyelerinin birbirinden bağımsız olarak analizi, hücre fizyolojisini etkileyebilecek ayrıntılı bir sıralama prosedürü olmadan neredeyse mümkün değildir. Ayrıca, bu modelin, GC'ler ve TC'ler bir bazal membran3 ile ayrıldığında, LH dalgalanmasından önceki durumu doğru bir şekilde kopyalamayabileceğini dikkate almak önemlidir. Sığırda, her iki hücre tipinin de bir kollajen zarının her iki tarafında yetiştirildiği ve böylece in vivo durumu daha kesin bir şekilde yansıttığı zar bazlı bir hücre kültürü sistemi önerilmiştir 22,23,24,25,26.
Membran tabanlı bir sistemin ilk konseptini uyarlayan bu yöntem, her iki hücre bölmesi arasında gelecekteki parakrin sinyalleşme çalışmalarını mümkün kılmak için hücre kültürü ekleri olan sığır GC'leri ve TC'leri için bir ortak kültür modeli oluşturmayı amaçladı. Sunulan yöntem, özel tabanlı bir membran sistemi yerine ticari olarak temin edilebilen asılı hücre kültürü eklerini kullanır ve daha yüksek tekrarlanabilirlik, standartlaştırılmış kalite ve gelişmiş ürün stabilitesi gibi avantajlar sunar. Bu yaklaşım, deneyler arasında tutarlılık sağlayarak foliküler hücre etkileşimlerini inceleyen araştırmacılar için değerli bir araç haline getirir. Kültür prosedürü, ekin alt tarafında 1.7-1.8 x 10⁵ teka hücresinin ilk tohumlanmasını, ardından inversiyondan sonra üst yüzeyde yaklaşık 1.0 x 10⁵ granüloza hücresini ve 72 saatlik bir ön inkübasyonu içerir. Kültürler, standart koşullar altında (37 °C,% 5 CO2) tanımlanmış ortamda tutulur ve ortam gün aşırı değiştirilir. Bölmeler arasında parakrin değişimini sağlamak için, polietilen tereftalat (PET) gibi polyesterden yapılmış 0,4 μm hücre kültürü ekleri kullanıldı (ticari olarak temin edilebilir). Bu gözenek boyutundaki zarlar, hücre göçünü önlerken hormonlar, büyüme faktörleri ve proteinler gibi çözünür makromoleküllerin difüzyonuna izin verir 27,28.
Bu ortak kültür sistemi, parakrin iletişimi sürdürürken uzamsal ayırmayı mümkün kılarak, granüloza-teka hücre etkileşimlerini, sinyal yollarını ve substrat değişimini araştırmak için fizyolojik olarak uygun bir ortam sağlar. Model özellikle hormon regülasyonu, gen ekspresyonu analizi veya ilaç testi gibi kontrollü koşullar gerektiren çalışmalar için uygundur. Foliküler dinamikler, üreme fizyolojisi veya yumurtalık bozuklukları ile ilgilenen araştırmacılar bu yöntemi çalışmalarına uygulanabilir bulabilirler. Ek olarak, standartlaştırılmış eklerin kullanımı, kültür süresi, hücre tipleri veya tedavi koşullarındaki değişiklikler dahil olmak üzere farklı deneysel ihtiyaçlara kolay adaptasyona izin verir.
Protokol
Sığır yumurtalıkları yerel bir ticari mezbahadan elde edildi. Bu deney düzeneğinde yumurtalıkların hazırlanması alındıktan sonra 2 saat içinde gerçekleştirilir. Mezbaha yan ürünlerinin toplanması Alman Yasalarına göre etik onay gerektirmez.
NOT: Sığır GC'lerinin izolasyonu ve kriyo-korunması, önceki bir yöntem raporu6'da zaten tanımlanmış ve gösterilmiştir ve buna göre gerçekleştirilebilir.
1. Yumurtalık folikülü diseksiyonu için reaktiflerin hazırlanması ve kurulumu
- Yumurtalıkların taşınması için 100 IU penisilin, 0.1 mg / mL streptomisin ve 0.5 μg / mL amfoterisin ile desteklenmiş 1x PBS (pH 7.4) hazırlayın. Çözelti 4 °C'de 4 haftaya kadar saklanabilir.
- 25 mM HEPES, 100 IU penisilin, 0.1 mg / mL streptomisin ve 0.5 μg / mL amfoterisin ile desteklenmiş 10x Hanks tuzu tamponu içeren sindirim solüsyonunu hazırlayın. Sindirim solüsyonu 4 °C'de 2-3 hafta saklanabilir.
- Planlanan her diseke folikül için 1.5 mL'lik tüplere 1 mL sindirim solüsyonu doldurun ve solüsyonu önceden 37 °C'ye ısıtın.
- Hazırlamadan kısa bir süre önce sindirim solüsyonunun% 0.1'lik bir konsantrasyonunu elde etmek için 10 μL Kollajenaz NB8 ekleyin.
- Hazırlama, izolasyon ve yıkama prosedürleri için aşağıdaki bulaşıkları hazırlayın.
- Diseksiyon için yumurtalıkları yerleştirmek için minimum 3 cm çapında cam tabaklar.
- Yıkama için 1 mL 1x PBS (antibiyotiklerle desteklenmiş) içeren 6 oyuklu bir plaka.
- Yaklaşık 10 μL sindirim çözeltisi içeren 12 oyuklu bir kap.
- Kriyo-koruma için, %80 fetal buzağı serumu (FCS) ve %20 DMSO'dan oluşan bir dondurma solüsyonu hazırlayın.
NOT: Kriyo-koruma için nihai DMSO konsantrasyonu% 10 olacaktır.
2. Sığır teka hücrelerinin müteakip sindirimi ile folikül diseksiyonu
- Hücre sindirim prosedürlerini ve hücre kültürü çalışmasını laminer bir akış tezgahı altında gerçekleştirin.
- Yüzeydeki kan ve diğer kalıntıları gidermek için yumurtalıkları 1x PBS'de (antibiyotiklerle desteklenmiş, bkz. adım 1.1) 2-3x yıkayın. Yumurtalıkları bir bardağa koyun, yumurtalıkları kaplayacak şekilde 1x PBS ile doldurun ve ardından solüsyonu atın. Yumurtalıklar temizlenene kadar bu adımı 3-4 kez tekrarlayın.
- Bir yumurtalığı bir cam kaba yerleştirin ve diseksiyon için bir cetvelle ölçülen 5-11 mm'lik folikülleri seçin.
- Foliküler sıvıyı 3 mL'lik bir şırınga ve 18 G'lik bir iğne ile seçilen bir folikülü delerek aspire edin. Foliküler sıvıyı atın.
- Aspirasyon sırasında iğnenin batırıldığı noktadan başlayarak folikülü makasla kesin. Hassas kesim için bir dürbün kullanın.
- En içteki tabaka olan teka interna'yı kavramak için folikülün kesici kenarında cımbız kullanın.
- Açık folikül duvarının iç tarafından teka internasını soymaya çalışın.
NOT: Folikülün yaşına veya evresine bağlı olarak, teka hücre tabakası daha kolay soyulabilir ve bu da sağlam bir teka tabakası ile sonuçlanır.
- Kalan granüloza hücrelerini çıkarmak için teka hücre tabakasını 1x PBS ile dolu bir tabağa yerleştirin (antibiyotiklerle desteklenmiş, bkz. adım 1.1.).
- Granüloza hücrelerini zarın iç tarafından bir neşter ile nazikçe kazıyın. Hücreler büyük kümeler halinde kolayca ayrılmalıdır.
- Teka hücre katmanını yıkamak için 1x PBS ile dolu yeni bir tabağa yerleştirin.
- Gevşek hücreleri çıkarmak için taze 1x PBS'yi döndürerek membranı dikkatlice durulayın.
NOT: Bir sonraki adımdan itibaren laminer akış kutusunun altında çalışın.
- Theca interna'yı 12 oyuklu plakanın hazırlanmış sindirim çözeltisine aktarın (bkz. adım 1.2 ve 1.3.3) ve bir neşter kullanarak muhtemelen 1-3 mm'lik küçük parçalar halinde kesin.
NOT: Farklı kökenlerden gelen dokuların tıkanmasını önlemek için teka hücrelerinin farklı foliküllerden bağımsız olarak sindirilmesi önerilir. - Teka parçacıklarını hazırlanmış bir 1.5 mL reaksiyon tüpüne aktarın (bkz. adım 1.2.1 ve 1.2.2). Tekayı termos çalkalayan bir inkübatörde 37 °C'de 800 rpm'de 45-50 dakika inkübe edin.
- 30 dakika çalkaladıktan sonra, reaksiyon tüplerini 3-5 saniye vortekslemeye başlayın ve çalkalama inkübatörüne geri yerleştirin.
- Kalan inkübasyon süresinde bu adımı 3-4 kez tekrarlayın.
- İnkübasyondan sonra, sindirilmiş hücreleri bir pipetle yeniden süspanse edin.
- 50 mL'lik bir tüp üzerine yerleştirilmiş 100 μm hücre süzgeci ile süzülerek sindirilmemiş dokuyu ortadan kaldırın ve sindirim ortamını çıkarmak için hücrelerin sayılması ve kriyo-korunmasına hemen devam edin.
3. TC'lerin sayılması ve kriyo-korunması
- Canlı hücrelerin sayısını saymak için, 1.5 μL% 0.25 tripan mavisi çözeltisi içeren bir tüp hazırlayın. Canlı hücreler lekesiz kalırken, tripan mavisinin kırık hücre bariyerlerinden geçmesi nedeniyle ölü hücreler mavi görünür.
- Tripan mavisi çözeltisine 15 μL sindirilmiş hücre süspansiyonu ekleyin ve hafifçe karıştırın.
- Bir hemositometrenin her iki odasına 10 μL karışım yerleştirin. Oda başına büyük bir karedeki canlı (= renksiz) hücrelerin sayısını sayın.
- Standart yönergeleri izleyerek her iki oda karesinin ortalaması ile canlı hücre sayısını belirleyin. Canlı hücrelerin oranının yumurtalıklar arasında farklılık gösterebileceğini unutmayın.
- Kültürlenmemiş bir kontrol olarak amaçlanan bir karşılaştırma için teka hücresi süspansiyonunun sindirilmemiş kısımlarını dondurun (bkz. adım 2.9) ve GC'lerle potansiyel çapraz kontaminasyonun bir değerlendirmesini yapın ( Şekil 2'de gösterildiği gibi).
- 100 μm hücre süzgecinde kalan her diseke edilmiş teka internanın sindirilmemiş dokusunu (bkz. adım 2.10) etiketli bir tüpe aktarın.
- -80 °C'de saklamadan önce tüpü sıvı nitrojen içinde şokla dondurun.
- Özellikle gerekli hücre sayısı ile ilgili olarak, hücre kültürlerinin daha iyi planlanmasını kolaylaştırmak için izole edilmiş teka hücrelerinin kriyo-korumasını gerçekleştirin.
- Sindirilmiş hücre süspansiyonunu oda sıcaklığında (ortalama 20 °C'de) 5 dakika boyunca 500 x g'da santrifüjleyin. Süpernatanı atın.
- Hücre peletini 1 mL %100 FCS içinde dikkatlice çözün. Hücre çözeltisine 1 mL dondurma ortamı ekleyin (bkz. adım 1.4). Kriyo-koruma için DMSO'nun nihai konsantrasyonu %10'dur. Karışımı belirtilen 2 mL'lik kriyo şişelerine aktarın.
- Sıcaklığın kontrollü bir şekilde düşürülmesi için şişeleri daha soğuk bir cihaza yerleştirin. Bu kurulumda, -80 °C'de en az 4 saat süreyle yerleştirildiğinde -1 °C/dk'lık bir donma oranını garanti eden özel bir dondurma kabı kullanılmıştır. Daha sonra flakonlar sıvı nitrojen depolama sistemlerinde saklanabilir.
4. Hücre kültürü çalışması için hazırlıklar
- 1,5 mL'lik bir reaksiyon tüpünün kapağını kesin. Daha sonra reaksiyon tüpünü bir neşter (tercihen ısıtılmış) veya uygun bir hortum kesici yardımıyla açıklıktan yaklaşık 1 cm kesin. Daha sonra kesilen tüpleri ve kapakları otoklavlayın. Kapaklar, hücre kültürünün sonraki prosedürleri için gerekli olabilir (bkz. adım 5.5).
NOT: 1,5 mL'lik tüplerin seçilen ek parçaya sıkıca oturduğundan emin olun. - GC'lerin ve TC'nin kültüre bağlanması için eklerin %0.02 kollajen R ile kaplandığından emin olun.
NOT: Steril bir laminer akış başlığı altında kaplama prosedürünü gerçekleştirin.- %0,02'lik bir kolajen R çözeltisi hazırlamak için arıtılmış su (hücre kültürüne uygun) kullanın. Gerekli her hücre kültürü eki için bu çözeltiden 80 μL hazırlayın.
- Ek parçayı 24 oyuklu bir plakanın kapağına baş aşağı yerleştirin. Ek parçanın zarına yavaşça 40 μL kollajen R solüsyonu ekleyin ve yerinde kalmasını sağlayın. Kollajen R solüsyonunu laminer akış başlığı altında 4-5 saat kurumaya bırakın.
- Ek parçayı çevirin ve ikinci tarafı tekrar 40 μL kollajen R çözeltisi ile kaplamak için 24 oyuklu plakanın kuyucuklarına asın. Çözeltiyi tekrar 4-5 saat kurumaya bırakın.
- Kontaminasyonu azaltmak için ekleri 10-15 dakika boyunca UV ışığıyla ışınlayın.
- Ekler 24 oyuklu plaka içinde (tercihen steril dağıtım torbasında) ve 4 °C'de bir buzdolabında saklanmalıdır ve 4 haftaya kadar kullanılabilir.
- Ortamı 8,10 aşağıdaki gibi hazırlayın:
NOT: Steril bir laminer akış başlığı altında ortam hazırlama prosedürünü gerçekleştirin.- α-Minimial Esansiyel Ortamı (α-MEM) 2 mM L-glutamin, %0.084 sodyum bikarbonat, %0.1 BSA, 20 mM HEPES, 4 ng/mL sodyum selenit, 5 μg/mL transferrin, 10 ng/mL insülin ve 1 mM esansiyel olmayan amino asitlerle destekleyin.
NOT: Tutarlılığı sağlamak için, tüm deney için önceden yeterli ortamın hazırlanması önerilir. Hazırlanan ortam 4 °C'de saklanabilir. Açıklanan kurulum için, hücre kültürü kuyusu başına 750 μL kullanın. - Ayrıca hazırlanan ortama 100 IU penisilin, 0.1 mg/mL streptomisin ve 0.5 μg/mL amfoterisin ekleyin.
- Ortamı bir su banyosunda 37 °C'de önceden ısıtın.
NOT: Ortamın ön ısıtılmasından sonra, antibiyotikler yaklaşık 48 saat stabildir. Bu nedenle, ısıtma için yalnızca istenen miktarda ortamı ayırın. - Ek olarak, fizyolojik hücre ortamı için α-MEM'i 20 ng/mL folikül uyarıcı hormon (FSH), 50 ng/mLR3 IGF-1 ve 2 μM androstenedion ile destekleyin 7,8,10,11.
NOT: Bu bileşenleri kültür veya ortam alışverişinin başlamasından kısa bir süre önce ekleyin. Tehlikeye atılmış bir faaliyeti önlemek için, FSH ve IGF-1 stok çözümlerinin tekrarlanan donma-çözülme döngülerinden kaçınmak zorunludur.
- α-Minimial Esansiyel Ortamı (α-MEM) 2 mM L-glutamin, %0.084 sodyum bikarbonat, %0.1 BSA, 20 mM HEPES, 4 ng/mL sodyum selenit, 5 μg/mL transferrin, 10 ng/mL insülin ve 1 mM esansiyel olmayan amino asitlerle destekleyin.
5. TC'lerin ve GC'lerin ortak kültürü
- Teka hücrelerinin kültürü için aşılama odasını hazırlayın (Şekil 1A).
- Kaplanmış ek parçayı baş aşağı daha büyük bir plakaya (örn. 12 oyuklu plaka) yerleştirin.
- Kesilmiş ve otoklavlanmış tüpü ters çevrilmiş bir kesici uç üzerine yerleştirin (bkz. adım 4.1). Medya sızıntısını önlemek için tüpün ek parçaya sıkıca oturduğundan emin olun.
- Kriyo ile korunmuş teka hücrelerini 37 °C'lik bir su banyosunda 3-5 dakika hızlı bir şekilde çözün ve çözüldükten hemen sonra hücre süspansiyonunu önceden ısıtılmış ortama aktarın.
- Teka hücresi süspansiyonunu oda sıcaklığında (ortalama 20 °C'de) 3 dakika boyunca 500 x g'da santrifüjleyin ve süpernatanı atın. Eklenen α-MEM'i ekleyin ve hücreleri dikkatlice yeniden süspanse edin.
- Tohum 1.7-1.8 x 10 Aşılama odasındaki ek başına5 hücre, 200 μL'lik bir ortamın son hacminde. Koşul başına en az üç teknik yineleme ekleyin.
- Hücre kültürü kabını bir kapakla kapatmak için, aşılama odasını kullanırken çanak ile kapak arasındaki mesafeyi artırmak gerekebilir.
- 1.5 mL'lik reaksiyon tüplerinden kesilmiş ve otoklavlanmış kapakları kullanın (bkz. adım 4.1) ve bunları hücre kültürü plakalarının her bir köşesine yerleştirin. Kapaklar, plakanın kapağını hafifçe kaldırmak için destek görevi görecek ve kültür kabını yeterince kaplarken aşılama odası için yeterli alan sağlayacaktır.
- Kuyu plakasını dikkatlice kapatın, sabit kaldığından ve membrana veya hazneye temas etmediğinden emin olun.
- Plakayı yavaşça nemlendirilmiş bir hücre kültürü inkübatörüne aktarın.
- Hücrenin zara bağlanmasına izin vermek için teka hücrelerini 37 °C'de %5CO2 ile 3 gün inkübe edin.
- GC'lerle tohumlamaya hazırlanmak için 3 günlük kültürden sonra eki çevirin (Şekil 1B).
- 24 oyuklu bir plaka hazırlayın ve istenen kuyucukların her birine 500 μL ortam doldurun.
- Bir pipetle tüm ortamı aşılama odasından çıkarın. Aşılama odasını cımbızla ek parçadan dikkatlice çıkarın.
- Ek parçayı, ekli teka hücreleriyle birlikte hazırlanan 24 oyuklu plakaya yerleştirin ve TC'lerin aşağı bakmasını sağlayın (daha fazla ayrıntı için Şekil 1B'ye bakın).
- Granüloza hücrelerini kriyo-korumadan tohumlamak için 5.2 ve 5.3 adımlarını gerçekleştirin.
- Ek parçanın içine yerleştirilen 250 μL'lik medyanın son hacminde ek başına yaklaşık 1,0 x10 5 hücre tohumlayın.
- Daha sonra, ko-kültürü 37 °C'de %5CO2 ile altı gün daha inkübe edin.
- Kültür ortamının yalnızca üçte ikisi değiştirildiğinde GC tohumlamadan sonra her 48 saatte bir ortam değişimi gerçekleştirin. Bu, prosedürün stresini azaltmalı ve yeni eklenen medyaya uyum sağlamaya yardımcı olmalıdır.
6. Kültürlenmiş teka ve granüloza hücrelerinin müteakip analizi
- Her iki hücre tipinin bağlanmasını ve yayılmasını izlemek için hücre kültürü boyunca teka ve granüloza hücrelerinin morfolojik değerlendirmesini bir faz kontrast mikroskobu ile yapın (bkz. Şekil 3).
- Steroid hormon analizi için ortamı toplayın ve -20 °C'de dondurun. İstenen steroid hormonlarının konsantrasyonlarını analiz etmek için uygun bir yöntem kullanın (örneğin, bu iş akışında östradiol RIA 5,29 ile analiz edilmiştir).
NOT: Steroid hormon analizi, kültürün fizyolojik durumunu değerlendirmeye yardımcı olur7. - Gen ekspresyonunu analiz etmek için öncelikle RNA'yı uygun bir teknikle (örn. kit prosedürleri) izole edin.
NOT: İzolasyon işlemi sırasında her iki hücre tipinin de birbirinden bağımsız olarak hazırlandığını unutmayın.- Hücreleri zarın her iki tarafından uygun bir reaktifle (örneğin, tripsin veya akütaz) ayırın. Ayrışma ortamını, zarın ayrışma ortamı ile tamamen çevrelenmesi için plakanın hem ekine (örneğin, 200 μL akütaz) hem de plakanın kuyucuklarına (örneğin, 500 μL akütaz) yerleştirin.
- Granüloza hücrelerini ek parçadan toplayın, ayrılan teka hücreleri ise kuyudan toplanabilir. Her hücre tipini 1,5 mL'lik bir tüpe aktarın.
- Hücreleri 3 dakika boyunca 500 x g'da santrifüjleyin ve süpernatanı atın.
- Hücreleri parçalayın, RNA izolasyonu yapın ve ardından RNA konsantrasyonunu ölçün.
NOT: Protokol, çoğu izolasyon prosedürü için hücrelerin parçalanmasından sonra durdurulabilir, böylece numuneler kısa süre için -20 ° C'de saklanabilir. Daha uzun bir depolama için parçalanmış hücreler -80 °C'de saklanabilir. - Daha sonra, qPCR ile ilgilenilen transkriptlerin bolluğunu ölçmek için cDNA'yı sentezleyin. cDNA sentezi, rastgele heksamer ve oligo-dT primerleri ile 100 ng RNA kullanır. qPCR için, daha önce tarif edildiği gibi gene özgü primerler kullanıldı 5,30. Kısaca, döngü koşulları şu şekildeydi: 95 °C'de 5 dakika ön inkübasyon, 95 °C'de 20 saniye 40 döngü denatürasyon, 60 °C'de 15 saniye tavlama, 72 °C'de 15 saniye uzatma ve 10 saniye boyunca tek noktadan floresan edinimi. Beş farklı konsantrasyondan (5x10-12-5x10-16 g DNA/reaksiyon) oluşan harici bir standart birlikte amplifiye edildi. Transkript bolluğunun normalleşmesi için RPLP0 ve TBP'nin geometrik ortalaması hesaplandı.
- Potansiyel çapraz kontaminasyonu ortadan kaldırmak için, TC'lerin ve GC'lerin yeni izole edilmiş hücre preparatlarından CYP17A1 ve CYP19A1 hücreye özgü belirteçlerin gen ekspresyonunu analiz ederek teka ve granüloza hücre preparatlarının saflığını değerlendirin (Şekil 2).
NOT: İstatistiksel bir değerlendirme, farklı hücre kültürlerinin en az üç kopyasını içermelidir. Bu deney düzeneğinde, normallik ve varyans kontrol edildikten sonra bir t-testi veya tek yönlü ANOVA yapıldı.
Sonuçlar
TC'ler ve GC'ler, foliküler bölümlendirmeye dayalı köklü mekanik ayırma teknikleri kullanılarak izole edilmiş olsa da, çapraz kontaminasyon riskini ortadan kaldırmak için hücre tipine özgü genlerin CYP17A1 ve CYP19A1 ekspresyonu değerlendirildi. CYP17A1 sadece yeni izole edilmiş TC'lerde eksprese edilirken , CYP19A1 ağırlıklı olarak yeni izole edilmiş GC'lerde eksprese edildi (Şekil 2).
Ortak kültür sistemi, sığır teka ve granüloza hücrelerinin bir membran ekinin karşıt taraflarında bölümlere ayrılmasını sağlar, böylece in vivo uzamsal organizasyonu taklit eder. Kültürde üç gün sonra, TC'ler, kollajen kaplı ek membranın yüzeyine yayılırken düzleştirilmiş ve uzamış bir morfoloji sergilediler ve bu da başarılı bir bağlanmayı gösterdi (Şekil 3A). 9 günlük sürenin tamamı boyunca tek başına kültürlendiğinde, TC'ler çoğalmaya devam etti ve 9. günde birleşme noktasına ulaştı (Şekil 3B). Buna karşılık, kollajen kaplı ek membran üzerinde 6 gün boyunca tek başına kültürlenen GC'ler, in vitro GC'lerin karakteristiği olan fibroblast benzeri bir fenotip geliştirdi (Şekil 3C). Ek olarak, daha önce tarif edildiği gibi, GC'ler, kültür 5,7,31,32'deki bu hücrelerin tipik bir özelliği olan kümeler oluşturma eğilimindeydi. Ko-kültür sisteminde, ilgili zamanla eşleşen mono-kültürlerle karşılaştırıldığında ne TC'lerde ne de GC'lerde belirgin morfolojik farklılıklar gözlenmedi (Şekil 3D), bu da ekleme tabanlı ortamın normal hücresel davranışı koruduğunu gösterir. Bununla birlikte, teknik sınırlamalar nedeniyle, ko-kültürün mikroskobik değerlendirmesi, özellikle TC morfolojisini diğer hücrelerden bağımsız olarak ayırt etme ve değerlendirmede zor olmaya devam etmektedir. Bu sınırlamaların üstesinden gelmek için, immün boyama için hücreye özgü antikorların yokluğunda hücre tanımlaması için alternatif stratejilerin araştırılmasına uygun olarak hücre fiksasyonu için optimize edilmiş bir protokol şu anda ele alınmaktadır.
Ko-kültür sisteminin işlevselliği, hormon üretimi ve TC'ler ve GC'ler33,34 için anahtar işaretleyici genlerin ekspresyonu analiz edilerek değerlendirildi ve hücre tipine özgü steroidojenik roller doğrulandı. GC mono-kültürü ile ko-kültür modeli arasındaki bir karşılaştırma, in vitro üretilen benzer estradiol (E2) seviyelerini ortaya çıkardı. Bununla birlikte, beklendiği gibi, TC mono-kültürü, teka hücrelerinin E2'yi bağımsız olarak sentezleme yeteneğinden yoksun olduğunu belirten 2 hücreli 2-gonadotropin hipotezi (Şekil 4A)15 ile tutarlı olarak sadece ihmal edilebilir miktarlarda E2 üretti.
Kültür koşullarının fizyolojik uygunluğunu daha fazla değerlendirmek için, anahtar belirteç genlerinin33 ekspresyonu incelendi. 2 hücreli-2-gonadotropin hipotezine uygun olarak, CYP19A1 ağırlıklı olarak GC'lerde eksprese edilirken, CYP17A1 esas olarak hem mono hem de ko-kültür koşullarında gözlenen bir model olan TC'lerde tespit edildi (Şekil 4B, C). Özellikle, östradiol konsantrasyonlarında gözlenen hiçbir farklılık olmamasına rağmen, CYP19A1'nin transkript bolluğu, GC mono-kültürüne kıyasla ortak kültür sistemi içindeki GC'lerde daha yüksekti.
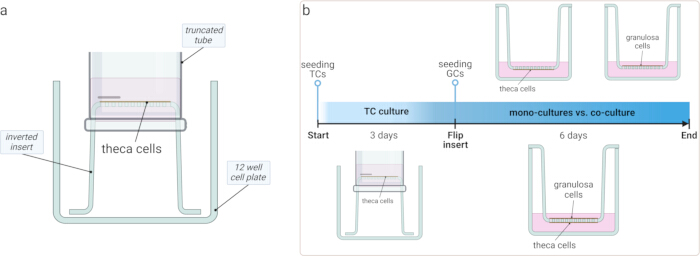
Şekil 1: Hücre kültürü kurulumunun şematik gösterimi. (A) İlk kültür periyodu boyunca ortam sızıntısını önlemek için ters çevrilmiş ek üzerinde kesik bir tüp kullanan özel yapım aşılama odasını gösteren bir diyagram. (B) Deneysel prosedürün zaman çizelgesi: TC'ler, bağlanmaya izin vermek için üç gün boyunca ters çevrilmiş ek üzerinde kültürlendi. Ek ters çevrildi ve GC'ler karşı tarafa ekildi, ardından altı günlük ek bir kültür yapıldı. Çalışma, TC-GC ortak kültür sistemiyle ayrı ayrı kültürlenen TC'leri ve GC'leri karşılaştırdı. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
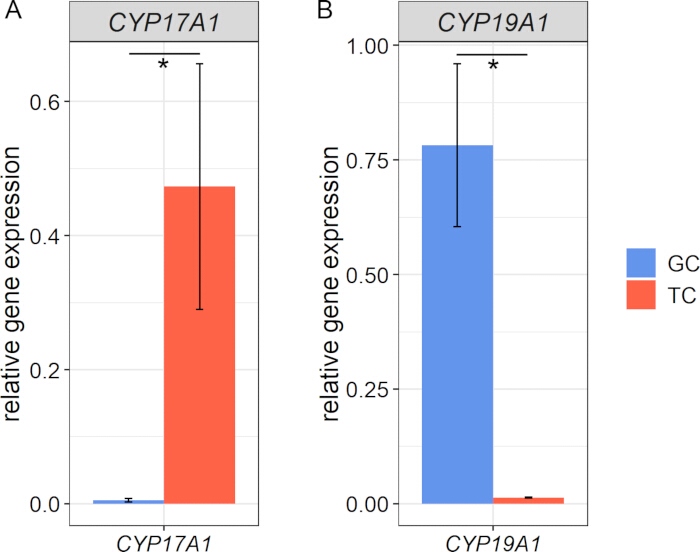
Şekil 2: Yeni izole edilmiş granüloza ve teka hücrelerinde hücre tipine özgü belirteçlerin gen ekspresyonu. (A) CYP17A1 yalnızca TC'lerde eksprese edilirken, (B) CYP19A1 ağırlıklı olarak GC'lerde tespit edildi ve kültürden önce izole edilmiş hücre popülasyonlarının özgüllüğünü ve başlangıç saflığını doğruladı. Veriler, referans genler RPLP0 ve TBP'nin geometrik ortalamasına normalize edilmiş nispi ekspresyon olarak sunulur. Ortalamalar ve ortalamaların standart hatası gösterilir, veriler normallik ve varyans açısından test edilir, yıldız işaretleri anlamlı farklılıkları gösterir (n=3, t-testi). Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
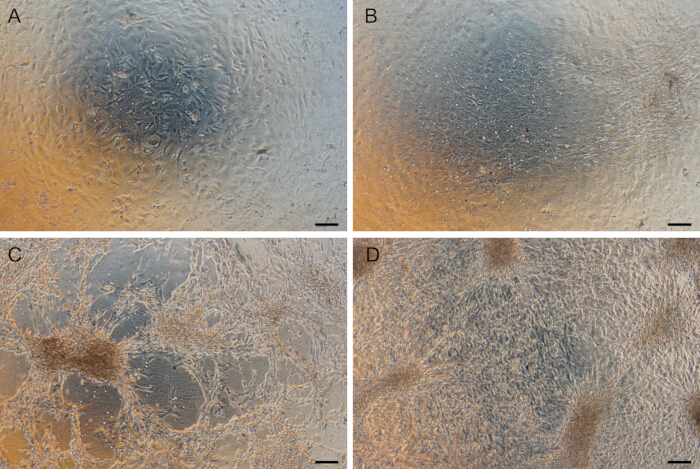
Şekil 3: Kültürdeki teka ve granüloza hücrelerinin morfolojisi. (A) 3 gün boyunca kültürlenen TC'ler, kollajen kaplı ek membrana bağlandı. (B) TC'ler, mono-kültürdeki 9 günlük sürenin tamamından sonra birleşti. (C) GC'ler, kültürde 6 gün sonra tipik fibroblast benzeri fenotipi gösterir. (D) TC'lerin ve GC'lerin ortak kültürü, ilgili zamanla eşleşen mono-kültürlere kıyasla belirgin bir morfolojik fark göstermez. Bu görüntü, 6 günlük GC kültürü ve 9 günlük TC kültüründen sonra (ko-kültür deneyinin bitiş noktasında) çekildi. Ölçek çubukları 100 μm. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
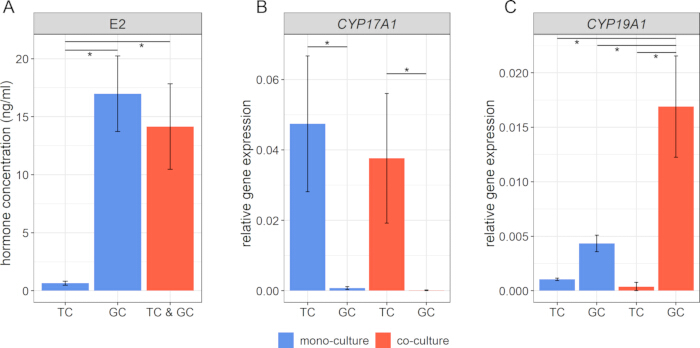
Şekil 4: Ko-kültür sistemindeki fonksiyonel belirteçlerin analizi. (A) Estradiol (E2) hormon konsantrasyonları, hücre kültürü sisteminin fizyolojik işlevselliğini doğrular. (B, C) TC belirteci CYP17A1 ve GC belirtecinin gen ekspresyonu analizi CYP19A1 her iki hücre popülasyonunun kimliğini ve işlevsel durumunu gösterir. Göreceli ifadeyi hesaplamak için referans genler RPLP0 ve TBP'nin geometrik ortalaması kullanıldı. Ortalamalar ve ortalamaların standart hatası gösterilir, veriler normallik ve varyans açısından test edilir, yıldız işaretleri anlamlı farklılıkları gösterir (n=3, tek yönlü ANOVA). Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
Tartışma
Bu ortak kültür modelini gerçekleştirmenin ön koşulu, herhangi bir çapraz kontaminasyonu önlemek için her iki hücre tipinin iyi gerçekleştirilmiş bir izolasyonudur. Her iki hücre preparatının saflığı, TC'ye özgü işaretleyici CYP17A1 ve GC'ye özgü işaretleyici CYP19A1'nin gen ekspresyonu ile değerlendirildi. Daha önce gösterildiği gibi, GC ve TC izolasyon tekniği, ilgili çapraz kontaminasyon30 göstermedi.
Bu ortak kültür modeli, bir zarın zıt taraflarında teka ve granüloza hücrelerinin aynı anda kültürüne izin verir, folikül içindeki uzamsal organizasyonlarını taklit eder ve her iki hücre popülasyonunun fizyolojik durumunu destekler3. Modelin geçerliliği, hormon üretim profili ve 2 hücreli-2-gonadotropin hipotezi15 ile uyumlu gen ekspresyon kalıpları ile güçlendirilmiştir. Beklendiği gibi, TC mono-kültüründeki düşük estradiol seviyeleri, teka hücrelerinin tek başına estradiol sentezleyemediğini doğrular ve foliküler steroidogenez35 hakkında yerleşik bilgileri destekler. Birlikte kültürlü GC'lerde daha yüksek CYP19A1 ekspresyonuna rağmen, estradiol seviyeleri GC mono-kültürü ile karşılaştırılabilir kaldı, bu da substrat mevcudiyeti, geri besleme inhibisyonu veya enzim aktivitesi farklılıkları gibi düzenleyici mekanizmaların etkisini düşündürdü. Gelecekteki çalışmaların konusu olarak sinyal yollarının ve altta yatan mekanizmaların daha fazla araştırılması garanti edilmektedir. Bununla birlikte, bu çalışmada sağlandığı gibi, sığır TC'leri ve GC'leri için işlevsel bir ortak kültür sisteminin kurulması zorunludur. Bu çalışma, ortak kültür modelinin işlevselliğinin temel göstergeleri olarak östradiol üretimi ve CYP17A1 ve CYP19A1 mRNA ekspresyon seviyelerine odaklanmıştır. Her ikisi de granüloza ve teka hücre fonksiyonunun 4,8,36 hassas belirteçlerini temsil eder ve doğrudan 2 hücreli-2-gonadotropin hipotezi15 ile uyumludur. Protein ekspresyonunun önemini kabul ederken, güvenilir antikorların olmayışı doğru değerlendirmesini engelledi; Bu nedenle, protein seviyelerinin kapsamlı bir analizi, bu ilk araştırmanın kapsamı dışındaydı.
Genel olarak, bu model, yumurtalık folikülü3'ün yapısını kısmen taklit eden geleneksel 2D kültür modelinin daha da geliştirilmiş halidir. Sonuçlar, GC ve TC fizyolojisi için hassas belirteçlerin ekspresyonu ile ortaya çıkan her iki hücre bölmesinin fizyolojik durumunu destekler.
Geleneksel 2D kültür modellerine göre bir avantaj, teka ve granüloza hücreleri arasındaki parakrin etkileşimleri kolaylaştırırken, mekansal ayrımlarını koruyarak in vivo foliküler yapıyı daha iyi taklit etmesidir. Buna karşılık, TC'lerin ve GC'lerin tek bir kuyuda karıştırıldığı çanak üstü ortak kültür sistemleri bu yapısal organizasyondan yoksundur. Bu tür sistemleri kullanan çalışmalarda yaygın olarak 4:1 19,20,21'lik bir GC:TC oranı uygulanmıştır, ancak bu yaklaşım in vivo olarak bulunan bölümlendirmeyi yansıtmaz ve bu nedenle substrat değişimini analiz etmek için uygun olmayabilir. Ayrıca, bu GC-TC karışımının karmaşık bir şekilde sıralanması gerektiğinde, hücre düzeyinde bulunan değişiklikler kolayca tespit edilemez.
Granüloza ve teka hücreleri için üç boyutlu ko-kültür modelleri kıt olmaya devam ediyor, ancak erken girişimler umut verici sonuçlar verdi. Kotsuji 22,23,24,37 grubu daha önce fiziksel bir ayırıcı olarak bir kollajen membranı kullanarak kültürde granüloza ve teka hücrelerinin etkileşimini tanımlamıştı. Ancak bu sistem, özel yapım bir kolajen membrana dayanıyordu ve bu da tekrarlanabilirliği ve standardizasyonu zorlaştırıyordu. Buna karşılık, sunulan ortak kültür modeli, tekrarlanabilirliği, standardizasyonu ve ürün kalitesini artıran ve laboratuvarlar arasında daha geniş uygulanabilirlik sağlayan, ticari olarak temin edilebilen asılı kültür eklerinden yararlanmaktadır. Burada sunulan model, önceki modellerden daha yüksek estradiol üretimi ile sonuçlanmış olsa da, hücre kültürü takviyelerinin, özellikle kullanılan konsantrasyonların26 veya IGF-1'in 22,23,24,37 ek kullanımının birliğinden yoksun olduğu için bu modellerin karşılaştırılması zordur.
Prosedürdeki en önemli adımlardan biri, aşılama odası içindeki TC'lerin kültürüdür. Aksi takdirde TC'nin bağlanmasını ve hayatta kalmasını tehlikeye atabilecek ortam sızıntısını önlemek için haznenin ters çevrilmiş ek parçaya güvenli bir şekilde yerleştirildiğinden emin olmak çok önemlidir. Bu nedenle, aşılama odasının cımbız yardımıyla ters çevrilmiş ek parça üzerine sıkıca bastırılması ve aşılama odasının yerleşiminin görsel olarak incelenmesi tavsiye edilir. Ek olarak, aşılama odasının çıkarılması ve ek parçanın üç gün sonra çevrilmesi teknik hassasiyet gerektirir. Bu adımı, bağlı hücreleri bozmadan ve/veya zarar vermeden gerçekleştirmek için bazı beceri eğitimleri gerekli olabilir. Bir diğer önemli husus, GC'lerin tohumlama yoğunluğudur. Ek başına 1.0 x 10⁵ hücrelik optimal seviyeleri aşan daha yüksek hücre yoğunluğu, potansiyel olarak steroidojenik çıktıyı etkileyen GC'lerin farklılaşmasına yol açabilir. Ayrıca, sunulan kriyo-koruma yöntemi, her iki hücre tipi için de %80-90'lık bir çözülmeden sonra canlılık sağlamıştır.
Tarif edilen model, granüloza ve teka hücre etkileşimlerini incelemek için fizyolojik ve tekrarlanabilir bir sistem sunsa da, bazı sınırlamalar dikkate alınmalıdır. Yöntem diğer türlere de uyarlanabilir; ancak türe özgü farklılıklar, hücre yoğunlukları, zamanlama veya ortam bileşimi gibi hücre kültürü parametrelerinin optimizasyonunu gerektirebilir. Bu modelin ölçeklenebilirliği, hücre kültürü eklerinin mevcudiyeti ile sınırlıdır, ancak çoğu efektör çalışması için yeterli olabilir. Son olarak, bu ortak kültür modeli, folikülün in vivo durumunu taklit etmeye yönelik bir sonraki adımdır, ancak yine de yumurtalık folikülünün tam karmaşıklığından yoksundur.
Sonuç olarak, sunulan model, kültür periyodunun uzatılması, hücre sayılarının veya oranlarının ayarlanması veya ek faktörlerin dahil edilmesi gibi farklı deneysel ihtiyaçları karşılamak için kolayca değiştirilebilir. Daha da geliştirildiğinde, bu sistem foliküler fonksiyon, steroidogenez ve her iki hücre bölmesi arasındaki hücre sinyalini incelemek için değerli bir aracı temsil eder. Ek olarak, farklı bileşiklerin foliküler hücreler üzerindeki etkisini değerlendirmek için kontrollü bir platform sağlayarak üreme toksikolojisindeki uygulamalar için potansiyele sahiptir.
Açıklamalar
Tüm yazarlar çıkar çatışması olmadığını beyan eder.
Teşekkürler
Veronica Schreiter, Maren Anders ve Olivier Seidel'e mükemmel teknik yardımları için minnettarlığımızı ifade etmek isteriz. Ayrıca, bu çalışma için yumurtalıkları aldığımız ticari mezbaha "DANISH CROWN Teterower Fleisch GmbH" (Almanya) şirketine de teşekkür etmek isteriz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 10x Hank's Dengeli Tuz Çözeltisi HBSS (w Mg/Ca, Fenol Kırmızı) | Biyo& Satmak | BS. L201-10 | ultra saf suda çözün; pH'ı sindirim solüsyonunun (HBSS ve HEPES) 7,4'üne ayarlayın ve kullanmadan önce steril filtrasyon yapın |
| 18 G iğne, 40 mm, çap 1,2 mm | Roth | 281T.1 | tek kullanımlık iğne, kısa kesim |
| 3 ml şırınga (Omnifix Luer) | Roth | LY22.1 | |
| Accutase | Merck | A6964 Serisi | şirket şubesi: Sigma-Aldrich |
| amfoterisin B (250 & mikro; g/ml) | Biyo& Satmak | BS. AB17.01050 | |
| androstenedione | Merck | 46033 | %100 etanol ile seyreltilmiş 10 mM'lik bir stok çözeltisi kullanıyoruz; şirket şubesi: Supelco |
| dürbün Carl Zeiss Technival2 | Carl Zeiss Jena | uygulanamaz | gelen ışık Schott KL 1600 LED ile birlikte kullanılır |
| BSA (%5) | Merck | A3311 Serisi | şirket şubesi: Sigma-Aldrich |
| Hücre Süzgeci (100 &Micro; m gözenek boyutu) | Sarstedt | 83.3945.100 | 50 ml santrifüj tüplerine montaj |
| kolajen R (%0,2) | Serva | 47254 | |
| Kollajenaz NB8 (%10) | Kuzey işareti | S1745601 | |
| CoolCell LX hücre dondurma kabı | Merck | CLS432002 | Corning'den ürün |
| Kriyo koruma şişeleri (2 ml) | TPP Faust | TPP89020 | |
| kültür kabı, 12 oyuklu, düz tabanlı | TPP Faust | TPP92112 | |
| kültür kabı, 24 oyuklu, düz tabanlı | TPP Faust | TPP92424 | |
| kültür kabı, 6 oyuklu, düz tabanlı | TPP Faust | TPP92006 | |
| DMSO'nun | Roth | 4720.1 | |
| Ca2+, Mg2+ olmadan DPBS | Biyo& Satmak | BS. L182-10 | Kullanmadan önce ultra saf suda ve otoklavda çözün |
| estradiol, 17b-[2,4,6,7-3H] | Hartmann Analitik | ART1555 | |
| fetal buzağı serumu (FBS Superior stabil) | Biyo& Satmak | FBS. S0615 | |
| FSH (~7.000 IU/mg; insan hipofizinden) | Merck | F4021 Serisi | 2 µ stok çözelti kullanmayı tercih ederiz; g/ml, %0,9 NaCl içinde seyreltilmiş; şirket şubesi: Sigma-Aldrich |
| asılı hücre kültürü ekleri (0.4 µ m gözenek boyutu) | cellQART | 9320412 | sipariş verirken kesici uçların farklı özelliklerinin farkında olun; faz kontrast mikroskobu için şeffaf bir PET membran tercih ediyoruz |
| HEPES (1 M) | Roth | 9105.2 | pH'ı sindirim solüsyonunun (HBSS ve HEPES) 7,4'üne ayarlayın ve kullanmadan önce steril filtrasyon yapın |
| Holo-transferrin (sığır) | Merck | T1283 Serisi | steril suda çözün; şirket şubesi: Sigma-Aldrich |
| innuPREP RNA Mini Kiti 2.0 | IST innuscreen | 845-KS-2040250 | |
| insülin (10 mg/ml; sığır pankreasından) | Merck | I0516 | 1x PBS içinde çözülür; şirket şubesi: Sigma-Aldrich |
| L-Glutamin (200 mM) | Biyo& Satmak | BS. K0283 | |
| LR3-IGF-1 | Merck | I1146 | 200 µ stok çözümü kullanıyoruz; g/ml, 10 mg/ml BSA ile 1 mM HCl ve 1x PBS içinde çözülmüş; şirket şubesi: Sigma-Aldrich |
| NanoDrop 1000 Spektrofotometre | Termo Bilimsel | uygulanamaz | RNA konsantrasyonu ölçümü |
| NEA (100x) | Biyo& Satmak | BS. K0293 | |
| penisilin / streptomisin (10.000 IU / 10 mg / ml) | Biyo& Satmak | BS. A2213 | |
| Hücre kültürüne uygun arıtılmış su | Merck | W3500 Serisi | şirket şubesi: Sigma-Aldrich |
| SensiFAST cDNA Sentez Kiti | Biyolin | BIO-65054 (İngilizce) | dağıtım ortağı BioCat aracılığıyla sağlanır |
| sodyum bikarbonat (%7,5) | Biyo& Satmak | BS. L1713 Serisi | |
| sodyum selenit | Merck | S9133 Serisi | steril suda çözün; şirket şubesi: Sigma-Aldrich |
| termoshaker TS-100C | Fischer Bilimsel | 12357627 | HC18 bloğu ile birlikte kullanılır (Kat.-No. 12337627) |
| α-MEM | Biyo& Satmak | BS. F0915 Serisi |
Kaynaklar
- Adams, G. P., Jaiswal, R., Singh, J., Malhi, P. Progress in understanding ovarian follicular dynamics in cattle. Theriogenology. 69 (1), 72-80 (2008).
- Forde, N., et al. Oestrous cycles in Bos taurus cattle. Anim Reprod Sci. 124 (3-4), 163-169 (2011).
- Hennet, M. L., Combelles, C. M. The antral follicle: A microenvironment for oocyte differentiation. Int J Dev Biol. 56 (10-12), 819-831 (2012).
- Christenson, L. K., et al. Research resource: Preovulatory LH surge effects on follicular theca and granulosa transcriptomes. Mol Endocrinol. 27 (7), 1153-1171 (2013).
- Baufeld, A., Vanselow, J. Increasing cell plating density mimics an early post-LH stage in cultured bovine granulosa cells. Cell Tissue Res. 354, 869-880 (2013).
- Baufeld, A., Vanselow, J. A Tissue culture model of estrogen-producing primary bovine granulosa cells. J Vis Exp. (139), e58208(2018).
- Gutierrez, C. G., Campbell, B. K., Webb, R. Development of a long-term bovine granulosa cell culture system: Induction and maintenance of estradiol production, response to follicle- stimulating hormone, and morphological characteristics. Biol Reprod. 56 (3), 608-616 (1997).
- Hamel, M., Vanselow, J., Nicola, E. S., Price, C. A. Androstenedione increases cytochrome P450 aromatase messenger ribonucleic acid transcripts in non-luteinizing bovine granulosa cells. Mol Reprod Dev. 70, 175-183 (2005).
- Chandrasekher, Y. A., Fortune, J. E. Effects of oxytocin on steroidogenesis by bovine theca and granulosa cells. Endocrinology. 127 (2), 926-933 (1990).
- Silva, J. M., Price, C. A. Effect of follicle-stimulating hormone on steroid secretion and messenger ribonucleic acids encoding cytochromes P450 aromatase and cholesterol side-chain cleavage in bovine granulosa cells in vitro. Biol Reprod. 62 (1), 186-191 (2000).
- Gong, J. G., McBride, D., Bramley, T. A., Webb, R. Effects of recombinant bovine somatotrophin, insulin-like growth factor-I and insulin on bovine granulosa cell steroidogenesis in vitro. J Endocrinol. 143 (1), 157-164 (1994).
- Baufeld, A., Koczan, D., Vanselow, J. L-lactate induces specific genome-wide alterations of gene expression in cultured bovine granulosa cells. BMC Genomics. 20 (1), 273(2019).
- Baddela, V. S., Sharma, A., Plinski, C., Vanselow, J. Palmitic acid protects granulosa cells from oleic acid induced steatosis and rescues progesterone production via cAMP dependent mechanism. Biochim Biophys Acta Mol Cell Biol Lipids. 1867 (8), 159159(2022).
- Sharma, A., et al. Elevated free fatty acids affect bovine granulosa cell function: a molecular cue for compromised reproduction during negative energy balance. Endocr Connect. 8 (5), 493-505 (2019).
- Hillier, S. G., Whitelaw, P. F., Smyth, C. D. Follicular oestrogen synthesis - The two-cell, two- gonadotrophin model revisited. Mol Cell Endocrinol. 100, 51-54 (1994).
- Campen, K. A., Lavallee, M., Combelles, C. M. H. The impact of bisphenol S on bovine granulosa and theca cells. Reprod Domest Anim. 53 (2), 450-457 (2018).
- Glister, C., Richards, S. L., Knight, P. G. Bone morphogenetic proteins (BMP) -4, -6, and -7 potently suppress basal and luteinizing hormone-induced androgen production by bovine theca interna cells in primary culture: could ovarian hyperandrogenic dysfunction be caused by a defect in thecal BMP signaling. Endocrinology. 146 (4), 1883-1892 (2005).
- Wrathall, J. H., Knight, P. G. Effects of inhibin-related peptides and oestradiol on androstenedione and progesterone secretion by bovine theca cells in vitro. J Endocrinol. 145 (3), 491-500 (1995).
- Shores, E. M., Picton, H. M., Hunter, M. G. Differential regulation of pig theca cell steroidogenesis by LH, insulin-like growth factor I and granulosa cells in serum-free culture. J Reprod Fertil. 118 (2), 211-219 (2000).
- Gregoraszczuk, E. L., Ptak, A., Karniewska, M., Ropstad, E. Action of defined mixtures of PCBs, p,p'-DDT and its metabolite p,p'-DDE, on co-culture of porcine theca and granulosa cells: steroid secretion, cell proliferation and apoptosis. Reprod Toxicol. 26 (2), 170-174 (2008).
- Rak, A., Drwal, E., Wróbel, A., Gregoraszczuk, E. Resistin is a survival factor for porcine ovarian follicular cells. Reproduction. 150 (4), 343-355 (2015).
- Kotsuji, F., Tominaga, T. The role of granulosa and theca cell interactions in ovarian structure and function. Microsc Res Tech. 27 (2), 97-107 (1994).
- Orisaka, M., et al. Effects of ovarian theca cells on granulosa cell differentiation during gonadotropin-independent follicular growth in cattle. Mol Reprod Dev. 73 (6), 737-744 (2006).
- Tajima, K., et al. Role of granulosa and theca cell interactions in ovarian follicular maturation. Microsc Res Tech. 69 (6), 450-458 (2006).
- Tajima, K., et al. Effects of ovarian theca cells on apoptosis and proliferation of granulosa cells: changes during bovine follicular maturation. Biol Reprod. 66 (6), 1635-1639 (2002).
- Allegrucci, C., Hunter, M. G., Webb, R., Luck, M. R. Interaction of bovine granulosa and theca cells in a novel serum-free co-culture system. Reproduction. 126 (4), 527-538 (2003).
- Santaguida, S., et al. Side by side comparison between dynamic versus static models of blood-brain barrier in vitro: A permeability study. Brain Res. 1109 (1), 1-13 (2006).
- Pardridge, W. M. The Isolated Brain Microvessel: A Versatile Experimental Model of the Blood-Brain Barrier. Front Physiol. 11, 398(2020).
- Schneider, F., Brüssow, K. P. Effects of a preovulatory administered depot gonadotrophin-releasing hormone agonist on reproductive hormone levels and pregnancy outcome in gilts. Reprod Fertil Dev. 18 (8), 857-866 (2006).
- Nimz, M., Spitschak, M., Schneider, F., Fürbass, R., Vanselow, J. Down-regulation of genes encoding steroidogenic enzymes and hormone receptors in late preovulatory follicles of the cow coincides with an accumulation of intrafollicular steroids. Domest Anim Endocrinol. 37, 45-54 (2009).
- Amsterdam, A., May, J. V., Schomberg, D. W. Synergistic effect of insulin and follicle-stimulating hormone on biochemical and morphological differentiation of porcine granulosa cells in vitro. Biol Reprod. 39 (2), 379-390 (1988).
- Monga, R., Sharma, I., Datta, T. K., Singh, D. Characterization of serum-free buffalo granulosa cell culture and analysis of genes involved in terminal differentiation from FSH- to LH-responsive phenotype. Domest Anim Endocrinol. 41 (4), 195-206 (2011).
- Bao, B., Garverick, H. A. Expression of steroidogenic enzyme and gonadotropin receptor genes in bovine follicles during ovarian follicular waves: A review. J Anim Sci. 76 (7), 1903-1921 (1998).
- Bao, B., et al. Changes in messenger ribonucleic acid encoding luteinizing hormone receptor, cytochrome P450 side chain cleavage, and aromatase are associated with recruitment and selection of bovine ovarian follicles. Biol Reprod. 56 (5), 1158-1168 (1997).
- Orisaka, M., Tajima, K., Tsang, B. K., Kotsuji, F. Oocyte-granulosa-theca cell interactions during preantral follicular development. J. Ovarian. Res. 2 (1), 9(2009).
- Gilbert, I., Robert, C., Dieleman, S., Blondin, P., Sirard, M. A. Transcriptional effect of the LH surge in bovine granulosa cells during the peri-ovulation period. Reproduction. 141 (2), 193-205 (2011).
- Kotsuji, F., Kamitani, N., Goto, K., Tominaga, T. Bovine theca and granulosa cell interactions modulate their growth, morphology, and function. Biol Reprod. 43 (5), 726-732 (1990).
Yeniden basım ve izinler
