Embriyonik primordial germ hücrelerinin pluripotent kök hücre kaynaklı bir vekil modeli olan İlkel Germ Hücre Benzeri Hücrelerin (PGCLC'ler) stabil in vitro amplifikasyonu teknik zorluklarla karşı karşıyadır. Bu protokol, PGCLC'lerin serum veya besleyici katman hücreleri olmadan in vitro durumda uzun vadeli genişlemesini destekler.
Yöntem makalesi
İnsan İlkel Germ Hücresi Benzeri Hücrelerin Uzun Süreli Kültürü
Bu makalede
Özet
Özet
İlkel germ hücreleri (PGC'ler), tüm erkek ve dişi germ hattı hücrelerinin ortak öncüleridir. PGC'ler, implantasyon öncesi memeli embriyolarında ortaya çıkar ve gonadal anlajın cinsel farklılaşması üzerine cinsiyete özgü germ hücresi öncüleri haline gelir. İnsan pluripotent kök hücrelerinden üretilen, yaygın olarak PGC Benzeri Hücreler (PGCLC'ler) olarak bilinen in vitro model, insan embriyonik PGC'lerinin yararlı bir vekilidir ve insan gametogenezini in vitro olarak keşfetmek için eşsiz bir fırsat sunar. Burada sunulan protokol, insan PGCLC'lerinin uzun vadeli in vitro genişlemesini desteklemektedir. Taze izole edilmiş PGCLC'ler, başlangıçta bir STO besleyici tabakası üzerinde tutulur ve daha sonra bazal membran ekstraktı üzerinde besleyicisiz bir durumda genişletilir. Uzun süreli kültür PGCLC'leri (LTC-PGCLC'ler), CD38 pozitif hücreler olarak Floresanla Aktive Edilmiş Hücre Sıralama (FACS) ile zenginleştirilebilir ve yaşlanma gibi belirgin sınırlamalar olmaksızın saf, besleyicisiz ve serumsuz monoton kültür olarak on milyonlarca hücreye kolayca amplifiye edilir. Birkaç bin yeni izole edilmiş PGCLC'den 1 milyondan fazla insan PGCLC'sinden oluşan saf bir popülasyon elde etmek pratik olarak mümkündür. İnsan LTC-PGCLC hücre kültürü, insan germ hücre biyolojisini ve aşağı akış germ hattı hücrelerine farklılaşmayı incelemek için yararlı ve kullanışlı bir in vitro modeldir.
Giriş
İlkel germ hücreleri (PGC'ler), tüm germ hattı hücrelerinin en eski öncüleridir. İnsan PGC'leri, implantasyon sonrası erken dönemde posterior epiblasttan (muhtemelen bağlanmamış amniyotik öncü hücreler) ortaya çıkar ve gebeliğin 2-3. haftasında embriyoları gastrüle eder 1,2,3,4,5,6,7. Hem insan hem de fare PGC'lerinin spesifikasyonu için, kemik morfogenetik proteinleri (BMP'ler) ve WNT3 tarafından aktive edilen sinyal yolları kritik rolleroynar 3,6. Fare PGC'lerinin spesifikasyonu için üç transkripsiyon faktörünün, BLIMP1, PRDM14 ve TFAP2C'nin indüklenmesi gerekliyken, insan PGC spesifikasyonunda PRDM14'ün rolü azalır. Fare PGC spesifikasyonu için vazgeçilebilir olan ancak insan PGC spesifikasyonu için vazgeçilmez olan SOX17, yalnızca EOMES'e veya hem EOMES hem de TBXT 7,8,9'a bağlı bir şekilde BMP sinyali ile indüklenir. İnsan PGC'leri, gebeliğin 5-6. haftalarında dorsal mezenter yoluyla genital sırtlarda posterior epiblasttan gonadal anlagene doğru göç eder 10,11,12,13,14,15,16. İnsan PGC göçü, deneysel onayı beklemesine rağmen, kemotaksis tarafından yönlendirilebilir. Göçmen insan PGC'lerinin transkriptomik profilleri, aynı aşamadaki fare PGC'lerininkilerle aynı değildir17,18. Örneğin, insan PGC'leri DAZL'yi gonadal anlagen'e yerleşmeden önce bile eksprese ederken, fare PGC'leri DAZL'yi ancak gonadal yerleşimlerindensonra eksprese eder 9. Gonadal somatik hücrelerin cinsiyete özgü farklılaşmasının başlaması üzerine, PGC'ler ayrıca prospermatogonia (gonositler olarak da bilinir) veya oogonia'ya farklılaşmaya uğrar.
İnsan embriyonik PGC'lerine erişim, teknik ve etik engeller nedeniyle son derece zor olduğundan, pluripotent kök hücrelerden türetilen PGC benzeri hücrelerin (PGCLC'ler) kullanımı giderek daha popüler hale gelmektedir3. Fare PGCLC'leri, gelişmiş global genomik DNA (gDNA) demetilasyonu ile karakterize edilen PGC'lerin göç sonrası aşamasına benzer ve döllenmeye yetkin sperm ve oositler 19,20,21 üretebilirler. Buna karşılık, insan PGCLC'leri, sınırlı global gDNA demetilasyonu 7,22,23,24 ile embriyonik PGC'lerin önceki aşamalarına benzer. İnsan PGCLC'lerinin, nispeten olgunlaşmamış durumlarına rağmen, oogonia 25,26 veya prospermatogonia27'ye benzeyen germ hücrelerinin daha ileri aşamalarına in vitro farklılaşma yeteneğine sahip olduğuna dair kanıtlar birikmektedir.
Irie ve ark. 2015 yılında insan pluripotent kök hücrelerinden ilk nesil PGCLC'leri yayınladı7, bir dizi laboratuvar insan PGCLC üretimi için çeşitli protokoller yayınlamıştır. Erken, standart protokoller, genellikle embriyoid cisimler 7,22,24,26,28,29 olarak adlandırılan pluripotent hücre agregatlarının oluşumunu içerir. İnsan PGCLC'leri, tümü PRDM1, SOX17, TFAP2C, POU5F1 ve NANOS3 gibi anahtar PGC işaretleyici genlerini güçlü bir şekilde eksprese eden karşılaştırılabilir transkriptomik profilleri paylaşan çeşitli agrega tabanlı protokoller kullanılarak üretilebilirken, pluripotens belirteci SOX2 veya geç evre PGC belirteci DDX4'ün ekspresyonu yaygın olarak bastırılır24. Gelişmiş ölçeklenebilirlik ve kolaylık için tek katmanlı hücre kültürlerinden insan PGCLC'leri üretmek için başarılı girişimler de bildirilmiştir30. PGCLC'lerin verimi nispeten küçük olmasına rağmen, gastrulasyon aşamasındaki embriyoların pluripotent kök hücre kaynaklı in vitro modellerinden insan PGCLC'lerinin başarılı üretimi, germ hattı spesifikasyonu ve erken evre PGC gelişimi mekanizmalarının aydınlatılmasına önemli ölçüde katkıda bulunur 31,32,33,34,35,36.
Çeşitli hücre kültürü yöntemleri kullanılarak üretilen insan PGCLC'lerinin verimi ve kalitesi artıyor olsa da, insan PGCLC'lerinin hücre kültürü genişlemesindeki teknik zorluk, kimyasal veya genetik tarama gibi büyük miktarlarda homojen hücre popülasyonları gerektiren deneyler için uygulanmalarının yanı sıra germ hattı hücrelerinin ileri aşamalarının üretimi için önemli bir engel oluşturmaktadır26. Gell ve ark. kök hücre faktörü (SCF) ve %2,5 fetal buzağı serumu (FCS) içeren FR10 bazlı bir ortamda STO besleyicilerinde insan PGCLC'lerinin 21 güne kadar tutulduğunu bildirdi; bununla birlikte, PGCLC'ler, PGC benzeri kimlikten, germ hattı hücre gelişimi ile ilgili olmayabilecek diğer hücre tiplerine ayrılma eğilimindeydi37. Murase ve ark. bu tür istenmeyen hücreleri her geçişte FACS ile kültürden tekrar tekrar ortadan kaldırdı ve insan PGCLC'lerinin proliferasyon potansiyellerini uzun vadede in vitro olarak koruyabildiğini gösterdi 38. Daha sonra, Murase ve ark. %2.5 FCS39 içeren bir ortamda insan PGCLC'lerinin başarılı bir şekilde amplifikasyonunu bildirdiler, ancak yöntemleri, eksojen bir vektör40'tan fare SCF'sinin zara bağlı formunu eksprese eden m220 fare embriyonik hücrelerinin kendiliğinden ortaya çıkan MMC'ye dirençli alt klonları olan m220-5 besleyici katman hücrelerini gerektirir. Bugün itibariyle, m220-5 hücreleri henüz halka açık bir depoya yatırılmamıştır. Bu nedenle, insan PGCLC kültürünü in vitro olarak çok sayıda homojen hücreye genişletmek, PGC benzeri özelliklerini standart olmayan bir besleyici hücre kaynağı gerektirmeyen ve verimliliği farklı partiler arasında değişebilen hayvan kaynaklı reaktifler içermeyen basit bir durumda korumak büyük bir zorluk olmaya devam etmektedir.
Yukarıdaki teknik engelin üstesinden gelmek için, insan PGCLC'lerinin homojen bir hücre popülasyonu olarak uzun vadeli in vitro genişlemesini sağlayan, PGC benzeri özellikleri serum veya besleyici tabaka hücreleri içermeyen bir durumda koruyan bir yöntem geliştirilmiştir41. İnsan PGCLC'leri telomerazı eksprese ettiğinden, bu hücreler en az 150 gün boyunca hiçbir yaşlanma veya diğer hücre türlerinden sapma belirtisi olmaksızın sabit bir oranda çoğalır. Uzun süreli kültür PGCLC'leri (LTC-PGCLC'ler), insan PGC benzeri transkriptomik özelliklerini korur, ancak global gDNA'ları tekrarlanan geçişler üzerine mütevazı bir şekilde demetillenir. LTC-PGCLS, H19 RNA ekspresyonunun damgalanmış alelik kısıtlaması kaybolmasına rağmen, iPSC benzeri transkriptom ve gDNA metilomunu geri yükleyerek, pluripotent embriyonik germ hücresi benzeri hücrelere (EGCLC'ler) kolayca dönüştürülür. LTC-PGCLC'ler ayrıca xrTestis ksenobiyotik organoid kültüründe27 prospermatogonia'ya benzeyen DAZL eksprese eden hücrelere farklılaşma yeteneğine sahiptir. Bu nedenle, insan LTC-PGCLC modeli, PGCLC'lerin biyolojik özelliklerini kalıcı olarak koruyan ve stabil bir hücre hattı olarak in vitro olarak kolayca genişletilen, stabil bir şekilde korunan, pluripotensi ile ilgili yeni bir hücre kültürü kaynağı türünü temsil eder.
Bu makale, taze izole edilmiş, FACS ile zenginleştirilmiş saf insan PGCLC popülasyonunu, standart STO besleyici katman hücreleri tarafından zamansal destek yoluyla ve daha sonra Bazal Membran Ekstraktı (BME) üzerinde besleyicisiz bir durumda serumsuz, uzun süreli bakım kültürüne uyarlama yöntemini açıklamaktadır. Bu yöntem, daha önce 24,41,42 tarif edildiği veya Sasaki ve ark.22 tarafından rapor edildiği gibi embriyoid vücuda bağımlı protokol kullanılarak üretilen insan PGCLC'lerinin in vitro genişlemesini ve Overeem ve ark.30 tarafından bildirilen tek katmanlı kültür yöntemini destekler. Tarif edildiği gibi hazırlanan insan PGCLC'lerine uygulandığında 41, 10.000 hücrelik bir başlangıç popülasyonu, 4 - 4.5 günlük bir popülasyon ikiye katlama süresi41 ile 1.5 - 2 ayda yaklaşık 1 x 10⁹ hücreye genişletilebilir. Bu yöntemin diğer yöntemlerle üretilen insan PGCLC'lerine uygulanabilirliği de beklenmektedir.
Protokol
1. Hücre kültürü ortamının hazırlanması
- Medyayı Tablo 1, Tablo 2, Tablo 3 ve Tablo 4'te açıklandığı gibi hazırlayın. Bu ortamların alikotlarını donmuş olarak saklayın.
- PGCLC Bazal Ortamını Tablo 1'de açıklandığı gibi hazırlayın. 40 mL'lik alikotlar yapın ve -20 °C'de 6 ay saklayın. STO ortamı 1'i Tablo 2'de açıklandığı gibi hazırlayın. 50 mL'lik alikotları 50 mL'lik santrifüj tüplerinde 4 °C'de 1 ay saklayın.
- STO ortamı 2'yi Tablo 3'te açıklandığı gibi hazırlayın. Hemen kullanın. Mitomisin-C ile muamele edilmiş STO hücreleri (MMC-STO) depolama ortamını Tablo 4'te açıklandığı gibi hazırlayın. 10 mL alikotları -20 °C'de 6 ay saklayın.
DİKKAT: Dimetil sülfoksit tehlikeli (yanıcı sıvı) olarak kabul edildiğinden, ısıdan, kıvılcımlardan, açık alevlerden veya sıcak yüzeylerden uzak tutulmalıdır. Bertarafı için yerel düzenleyici protokolü izleyin.
2. MMC ile tedavi edilen STO hücrelerinin hazırlanması
NOT: STO hücrelerinin MMC tedavisi, canlılıklarına önemli ölçüde zarar vermeden proliferasyon aktivitelerini inaktive eder. MMC-STO hücreleri, insan PGCLC'lerinin ilk kültürü (adım 4) sırasında besleyici katman hücreleri ve ayrıca hücresiz şartlandırılmış ortamın kaynağı (adım 3) olarak kullanılır.
- STO hücrelerini, birleşmeye yakın olana kadar dört P15 kabında STO ortamı 1'de büyütün. STO ortamını 1 ila 23 mL/çanak arasında değiştirin. 23 μL/kap 10 mg/mL konsantrasyonlu MMC'yi doğrudan ortama 10 μg/mL'lik bir nihai konsantrasyona ekleyin.
- İyice döndürün ve 37 °C'de bir CO2 inkübatöründe 4 saat inkübe edin.
DİKKAT: MMC, büyük miktarda yutulursa ölümcüldür ve şüpheli bir kanserojendir. Bu bileşiğin taşınması ve imhası yerel düzenleyici protokollere uygun olmalıdır. - Hücreleri 20 mL/tabak Dulbecco'nun PBS'si (Ca/Mg içermeyen) ile oda sıcaklığında 2 kez yıkayın.
- Hücreleri 4 mL/çanak TrypLE Express ile bir CO2 inkübatöründe 2 dakika ayırın. Nazik pipetleme ile hücreleri tek hücreli bir süspansiyona süspanse edin.
- İki kap hücre süspansiyonunu (8 mL), 30 mL buz gibi soğuk STO orta-1 içeren 50 mL'lik bir santrifüj tüpüne aktarın. İki tüp 38 mL hücre süspansiyonu yapmak için diğer iki tabak için tekrarlayın.
- Bir hemositometre veya otomatik hücre sayacı kullanarak hücresel canlılığın değerlendirilmesi için hücreleri %0.2 tripan mavisi varlığında sayın.
- Hücreleri 4 °C'de 5 dakika boyunca 300 x g'da santrifüjleyin. Süpernatanı atın. Hücre peletlerini buz gibi donmuş hücre depolama ortamında 5 x 10⁶ hücre/mL'ye kadar yeniden süspanse edin.
- Kriyojenik şişelerde MMC ile muamele edilmiş STO hücrelerinin 1 mL alikotlarını hazırlayın. Hücreleri bir strafor kutuda veya yavaş dondurma cihazında yavaşça dondurun ve -80 °C'de 12 aya kadar saklayın.
3. STO şartlandırılmış ortamın (S-CM) hazırlanması
NOT: MMC-STO hücrelerinin hücresiz şartlandırılmış ortamı (2. adımda hazırlanmıştır), PGC benzeri özellikleri kaybeden hücrelere sapmalarını bastırırken insan PGCLC'lerinin hayatta kalmasını ve çoğalmasını destekler.
- 1. Gün: MMC ile muamele edilmiş STO hücrelerini donmuş stoklardan çözün ve 5 x 10⁶ hücreyi 10 mL/kap STO-ortam 2 ile jelatin kaplı bir P10 kabına aşılayın. Bir partinin tipik boyutu 4 ila 8 P10 kabından oluşur. Hücreleri gece boyunca bir CO2 inkübatöründe 37 °C'de inkübe edin.
- Kuyucukları jelatin ile kaplamak için 1 mL/kuyucuk %0.1 jelatin ekleyin ve oda sıcaklığında en az 20 dakika inkübe edin. Fazla jelatin çözeltisini aspire edin ve kuruyana kadar biyogüvenlik kabininde kuyucukları açık bırakın. Jelatin kaplı plastik kapları oda sıcaklığında 2 hafta veya 4 °C'de 3 ay saklayın.
- PGCLC Bazal Ortamının alikotlarını gece boyunca 4 °C'de çözün.
NOT: Bu ortamın daha yüksek bir sıcaklıkta daha hızlı çözülmesi önerilmez. PGCLC bazal ortamını 4 °C'de 1 haftadan fazla saklamayın. - 2. Gün: STO-medium 2'yi çıkarın ve atın. Hücreleri ılık DPBS (~10 mL/tabak) ile yıkayın, ardından ılık PGCLC Bazal Medium (2 mL/tabak) ile yıkayın. Ilık PGCLC Bazal Ortamı (12 mL/tabak) ekleyin ve hücreleri gece boyunca bir CO2 inkübatöründe 37 °C'de inkübe edin.
- 3. Gün: Tüm şartlandırılmış ortamı 50 mL'lik bir santrifüj tüpünde toplayın. PGCLC Bazal Ortamını (12 mL / çanak) tekrarlayın ve ertesi gün aynı STO hücre kültüründen şartlandırılmış ortamın toplanması için inkübasyonu tekrarlayın. 300 x g'da toplanan şartlandırılmış ortamı 4 °C'de 5 dakika santrifüjleyin. 15 mL'lik santrifüj tüplerinde süpernatantın (S-CM) 10 mL'lik alikotlarını yapın. S-CM'de MMC-STO hücrelerinin kontaminasyonunu önlemek için 50 mL'lik tüplerin dibinde kalan ortamın son 3 mL'sini almayın. Alikotları -80 °C'de 6 aya kadar saklayın.
- 4. Gün: PGCLC Bazal Ortamında 5-6 günlük kültürden sonra MMC-STO tek katmanlı kültür bozulana kadar her gün adım 3.4'ü tekrarlayarak S-CM'yi hasat edin. Tabaktan %25 veya daha fazla hücre ayrıldığında hasadı durdurun.
4. İnsan PGCLC'lerinin uzun vadeli kültüre uyarlanması
- MMC-STO besleyici katmanında yeni izole edilmiş insan PGCLC'lerini kültürleyin. Daha önce yayınlanmış bir yöntemi kullanarak insan PGCLC'lerini hazırlayın (Mitsunaga ve ark.24; Kobayashi ve ark.41). İnsan PGCLC indüksiyonunun ayrıntılı protokolleri de yayınlanmıştır 42,43.
- 28 güne kadar ilk amplifikasyondan sonra, PGCLC'leri besleyicisiz bir kültür olarak BME'de LTC-PGCLC'ler olarak tutun. PGCLC kültürünün bu iki adımı boyunca, SCF takviyesi ile STO koşullu ortamı (S-CM, adım 3'te hazırlanmıştır) kullanın, ancak FCS'yi dahil etmeyin. ROCK inhibitörü sadece geçişten hemen sonra gereklidir.
NOT: BME olarak laboratuvarımızda ESC sınıfı Matrigel kullanılmıştır. Diğer ticari ürünler, LTC-hPGCLC'lerin uzun vadeli genişlemesini desteklemedi. - 1. Gün: MMC ile muamele edilmiş STO besleyici katman hücrelerini jelatin kaplı 6 oyuklu plakalarda 8 x 10⁴ hücre/cm2'ye 3 mL/kuyucuklu STO-ortam 2 ile aşılayın. Besleyici tabakayı gece boyunca bir CO2 inkübatöründe 37 °C'de inkübe edin.
- 2. Gün: STO-medium'u kültürden atın ve hücreleri ılık Dulbecco'nun MEM'i (serumsuz), 3 mL/kuyu ile yıkayın. 0.1 mM 2-Merkaptoetanol, 50 μg/mL askorbik asit, 100 ng/mL insan rekombinant SCF ve 10 μM Y-27632 ile taze olarak desteklenmiş 3 mL/kuyu S-CM ekleyin. Her bir kuyucuktaki STO besleyici katmanına 500 - 2.000 taze izole edilmiş insan PGCLC'sini aşılayın. Hücreleri gece boyunca bir CO2 inkübatöründe 37 °C'de inkübe edin.
NOT: Düşük konsantrasyonlarda bile serumun varlığı, insan PGCLC'lerinden istenmeyen hücre türlerinin ortaya çıkmasına neden olma eğilimindedir41. İnsan PGCLC'lerinin büyümesi kesinlikle SCF41'e bağlıdır. Y-27632, aşılama sırasında tek hücreli insan PGCLC'lerinin hayatta kalmasını destekler, ancak idame kültürü sırasında gerekli değildir. Ortama taze olarak 2-Merkaptoetanol, askorbik asit, SCF ve Y-27632 ekleyin. Tipik bir deneyde, PGCLC'ler 6 oyuklu bir plakanın tüm kuyucuklarına aşılanır. Başlangıç malzemesi olarak daha fazla sayıda PGCLC mevcutsa, kuyu başına 10.000 PGCLC'ye kadar daha yüksek bir yoğunluk kabul edilebilir. - 3. Gün: Ortamın yarısını (1,5 mL/kuyu), 0,1 mM 2-Merkaptoetanol, 50 μg/mL askorbik asit, 100 ng/mL insan rekombinant SCF ile desteklenmiş ancak Y-27632 içermeyen ılık S-CM ile değiştirin. Güçlü bir ortam akışı ile besleyici katmandan ayrılabilen PGCLC'leri rahatsız etmeyin.
- 5 - 28. Günler: Adım 4.5'i gün aşırı tekrarlayın. PGCLC'ler tipik olarak 4.5 günlük popülasyon ikiye katlama süresinde41 çoğaldığından, 6-7. günde veya daha sonra küçük PGCLC kümeleri ortaya çıkar (Şekil 1A-D). Kümeler 14-15. günlerde daha belirgin hale gelecektir (Şekil 1E,F). Doğru PGCLC'lerden sapan anormal morfolojik özelliklere sahip istenmeyen hücresel küme türleri ortaya çıkarsa, bu tür kümeleri içeren kuyucukları atın veya adım 4.9'da daha sonra açıklanan diferansiyel yapışma tekniğini kullanarak anormal hücreleri ortadan kaldırmaya çalışın.
- PGCLC'ler, %20'den fazla kültür alanını (~ Gün 28) kaplayan kümeler oluşturmak üzere genişlediğinde, hücre ayırma solüsyonunu (CDS) kullanarak hücreleri ayrıştırın. S-CM'yi PGCLC kültürünün kuyucuklarından çıkarın ve hücreleri yıkamadan 1 mL/kuyuda önceden ısıtılmış CDS ekleyin. Hücreleri 37 °C'de bir CO2 inkübatöründe PGCLC'ler kuyucuklardan ayrılana kadar 5 dakika inkübe edin.
NOT: Hafif ayrışma için CDS olarak accutase önerilir. CDS'yi 37 °C'de 5 dakikadan fazla ısıtmayın. PGCLC ayrılması nazik pipetleme ile kolaylaştırılabilir, ancak PGCLC'lerin tek hücreli bir süspansiyona tamamen ayrıştırılmasına gerek yoktur. Küçük PGCLC kümeleri canlılığı artırabilir. İstenmeyen hücre türleri ortaya çıkar ve hızla büyürse, besleyici hücrelerden ve çoğu istenmeyen hücre türünden daha erken ayrılma eğiliminde olan PGCLC'lerin seçici toplanması için hücre ayrılması sırasında CDS'deki inkübasyon süresini ayarlayın. İstenmeyen hücre türlerinin kalıcı olarak ortaya çıkması PGCLC'lerin genişlemesini bozarsa, adım 4.9'da açıklandığı gibi jelatin kaplı kuyucuklara daha hızlı yapışmalarını kullanarak istenmeyen hücreleri çıkarmaya çalışın. PGCLC'lerin FACS tarafından zenginleştirilmesi, canlı PGCLC'lerin önemli bir bölümünü kaybetme eğiliminde olduğundan, besleyici katmanın alan boyutunu buna göre azaltın. - CDS ile hücre ayrılmasını durdurmak için, hücre süspansiyonunu 10x hacimde ılık PGCLC Bazal Ortam ile seyreltin ve 4 °C'de 5 dakika boyunca 300 x g'da santrifüjleyin. Accutaz gibi bazı CDS'lerin enzimatik aktivitesinin serum veya tripsin inhibitörleri tarafından baskılanmadığına dikkat edin. Süpernatanı atın ve hücreleri, 0.1 mM 2-Merkaptoetanol, 50 μg/mL askorbik asit, 100 ng/mL insan rekombinant SCF ve 10 μM Y-27632 ile taze olarak desteklenmiş 3 mL ılık S-CM içinde yeniden süspanse edin.
- Hücre süspansiyonunu% 0.1 jelatin ile kaplanmış 6 oyuklu plakaların kuyucuklarına aşılayın ve jelatin kaplı kuyucuklara hızla yapışan MMC-STO hücrelerini (ve istenmeyen hücre türlerini) çıkarmak için 37 °C'de bir CO2 inkübatöründe 30 dakika inkübe edin.
NOT: Besleyici hücrelerin yapışmasını değerlendirmek için hücrelerin 20 dakikalık inkübasyonda ve 30 dakikada faz kontrast mikroskobu ile incelenmesi önerilir. Kuluçka süresini 45 dakikaya kadar uzatmak gerekebilir. MMC ile tedavi edilen STO hücreleri S-CM'de çoğalamadığı ve bozulamadığı için besleyici hücreleri ortadan kaldırmak için FACS veya MACS kullanımı genellikle gerekli değildir. - İnsan PGCLC'lerinin besleyicisiz uzun vadeli kültürünü başlatmak için anormal hücre tiplerinden yoksun PGCLC'leri Bazal membran matris kaplı kuyucuklara aktarın. 6 oyuklu bir plakadaki tek bir kuyucuk için 1 x 10⁵ canlı PGCLC'nin aşılanması önerilir.
NOT: Tipik olarak, 1 x 10⁵ canlı (tripan mavisi boyama negatif) PGCLC'leri toplamak ve aşı hücre yoğunluğunu artırmak için bunları tek bir kuyuya tohumlamak için 6 kuyuya kadar hPGCLC'leri bir araya getirmek gerekir. Hasat edilen PGCLC'lerin sayısı 1 x 10⁵'e ulaşmazsa, nispeten yüksek bir PGCLC yoğunluğu elde etmek için 12 oyuklu veya 24 oyuklu plaka gibi daha küçük boyutlu bir kuyu kullanın. İlk alt kültür sırasında, çoğu MMC-STO besleyici katman hücresi bozulur ve geçiş prosedüründen sağ çıkamazlar. Az sayıda canlı MMC-STO hücresi, diferansiyel adezyon tekniği ile etkili bir şekilde uzaklaştırılır. BME kaplı kuyucuklarda birkaç MMC-STO hücresi kontamine olsa bile, çoklu geçiş sırasında kültürden kaybolacaktır. - İnsan PGCLC'leri, tek tek hücreler arasında önemli bir doğrudan fiziksel temas belirtisi olmayan, oldukça dağınık bir hücre popülasyonu olarak büyür (Şekil 1). Sıkı hücreler arası etkileşimler gösteren hücre kümeleri ortaya çıkarsa (Şekil 2A), adım 4.7'de açıklanan tekniği kullanarak kültürü geçirin. Haftada bir kez geçiş (1:4) genellikle yeterlidir.
NOT: İnsan PGCLC'lerinin FACS zenginleştirmesi tipik olarak gereksizdir. Bununla birlikte, istenmeyen anormal hücreler, adım 4.11'de açıklanan tekrarlanan diferansiyel yapışma tekniğinden sonra etkili bir şekilde çıkarılamazsa, insan PGCLC'lerinin CD38-pozitif hücreler 42,43 olarak birkaç FACS zenginleştirme döngüsü, saf bir LTC-hPGCLC popülasyonunun oluşturulmasını kolaylaştırır. Bir besleyici tabakanın yokluğunda BME kaplı tabaklarda büyüyen PGCLC'den türetilmiş anormal hücrelerin örnekleri Şekil 3'te gösterilmektedir. İstenmeyen hücre tiplerini indükleme riskini azaltmak için nispeten yüksek yoğunlukta PGCLC hücre kültürünü korumak önemlidir.- BME kaplı tabakları daha önce tarif edildiği gibihazırlayın 42,43. BME'yi gece boyunca buzdolabında veya soğuk bir odada buz üzerinde çözdürün. Donmuş BME'yi oda sıcaklığında çözmeyin veya ılık su banyosu kullanmayın.
- Aliquot BME (~200 μL; bir alikotun hacmi her parti için üretici tarafından belirlenir ve flakon etiketinde belirtilir) steril ve önceden soğutulmuş düşük bağlamalı santrifüj tüplerine veya buz üzerinde hücre kriyoprezervasyon tüplerine. Katılaşmayı önlemek için dağıtım sırasında BME'yi buz gibi soğuk tutmak önemlidir. Alikotları -80 °C'de saklayın.
- BME'nin bir alikotunu 25 mL buz gibi soğuk DMEM/F12 ile seyreltin ve üç adet 10 cm'lik tabağa (~8 mL/tabak) veya dört adet 6 oyuklu tabağa (toplam 24 kuyucuk, kuyucuk başına 1 mL) yayın. Bulaşıkları oda sıcaklığında en az 1 saat inkübe edin. Kaplamadan sonra bulaşıklar şeffaf film ile kapatılabilir ve oda sıcaklığında 1 haftaya kadar saklanabilir.
- Kullanmadan hemen önce bulaşıklardan ortamı aspire edin. Kaplanmış bulaşıkların yıkanmasına gerek yoktur.
- İstenmeyen hücre türlerinin ortaya çıkmasını bastırmak için BME üzerinde nispeten yüksek yoğunlukta LTC-PGCLC kültürü sağlayın. Geçiş PGCLC'leri, hücreler %25'ten fazla birleşmeye ulaştığında önerilir. Ortamın yarısı (1.5 mL/kuyu), 0.1 mM 2-Merkaptoetanol, 50 μg/mL askorbik asit ve 100 ng/mL insan rekombinant SCF ile taze takviye edilmiş ılık S-CM ile değiştirilmelidir.
NOT: PGCLC'lerin daha düşük yoğunlukta aşılanması, istenmeyen hücrelerin üretilmesi riskini artırır. İnsan PGCLC'lerinin popülasyon ikiye katlanma süresi yaklaşık 4.5 gün41 olduğundan, rutin haftalık geçiş tipik olarak uzun vadeli kültürü sürdürmek için yeterlidir. ROCK inhibitörünün (Y-27632) dahil edilmesi, PGCLC canlılığını iyileştirmek için yalnızca geçişten sonra gereklidir. - Güçlü bir ortam akışı ile besleyici katmandan ayrılabilen PGCLC'leri rahatsız etmeyin.
NOT: İnsan PGCLC'leri telomerazı eksprese ettiğinden, telomerlerin kısalması veya yaşlanmayla ilişkili β-galaktosidaz41'in ekspresyonu gibi belirgin yaşlanma belirtileri olmadan çoğalırlar. - İnsan PGCLC'leri, önemli miktarlarda istenmeyen hücre türleri üretmeden stabil proliferasyon kazandığında, işaretleyici genlerin ekspresyon profilini çıkararak PGC benzeri özelliklerini inceleyin.
NOT: İstenmeyen hücre tiplerinin olası kontaminasyonunu değerlendirmek için her bir hücrenin karakterizasyonu için uygun analitik yaklaşımlar (immünofloresan, FACS veya tek hücreli RNA-seq gibi) teşvik edilir. Bu tür analizlerin sonuçları, PGCLC'lerin PGC benzeri doğasını destekliyorsa, bir LTC-hPGCLC kültürünün kurulduğu doğrulanır. - LTC-PGCLC'leri bir hücre dondurma ortamında donmuş olarak saklayın (kriyojenik flakon başına 1 x 10⁶ hücre/mL). Başlangıç materyali olarak toplam 10.000 insan PGCLC'sinden başlayarak, 1 x 10⁶ PGCLC'nin toplam verimi 6 haftada elde edilebilir. Kriyojenik şişeleri içeren bir kağıt veya plastik kutuyu sıkıca kapatılabilir bir strafor kutuya yerleştirin. Yavaş dondurmak için kapalı kutuyu gece boyunca -80 °C'lik bir dondurucuya koyun. Ardından şişeleri -80 °C'lik bir dondurucuya veya sıvı nitrojen tankına yerleştirin.
- Dondurulmuş hücrelerden oluşan bir şişeden kültürü başlatmak için aşağıda açıklanan adımları izleyin.
- Şişelerin tabanını suda tutarken hücreleri 37 °C'lik bir su banyosunda manuel çalkalayarak hızlı bir şekilde çözün. İçeriğin %>80'i şişede çözüldüğünde, şişeyi tüy bırakmayan kağıt mendiller veya eşdeğer laboratuvar kağıdı ile kurulayın ve kapağın etrafını alkollü bir bezle silin.
- Hücreleri önceden ısıtılmış (37 °C) PGCLC bazal ortamı içeren 15 mL'lik bir santrifüj tüpüne aktarın. Şişede küçük bir donmuş hücre kalırsa, bunları pipetleme yoluyla PGCLC bazal ortamıyla geri kazanın.
- Hücreleri hemen oda sıcaklığında 5 dakika boyunca 300 x g'da santrifüjleyin ve süpernatanı çıkarın.
- Hücre peletini, 0.1 mM 2-Merkaptoetanol, 50 μg/mL askorbik asit, 100 ng/mL insan rekombinant SCF ve 10 μM Y-27632 ile taze olarak desteklenmiş 9 mL önceden ısıtılmış S-CM ile yeniden süspanse edin. 1.000 mL'lik pipet uçları kullanarak hücreleri yavaşça askıya alın.
- Kültürü başlatmak için BME kaplı plakanın 3 kuyucuğuna 3 mL/kuyucuk aşılayın. Hücrelerin eşit dağılımı için plakaları dikey ve yatay olarak hafifçe sallayın. Dairesel sallama hareketinden kaçının, çünkü böyle bir hareket hücreleri kuyuların merkezine taşıyacaktır. Donmuş bir stoktan geri kazanıldıktan hemen sonra hücrelerin canlılığı tipik olarak %80'den fazladır.
Sonuçlar
Temsili Sonuçlar - PGCLC'ler tipik olarak aşılamadan sonraki 2 hafta içinde MMC-STO besleyici katmanında görünür kümeler oluşturur (Şekil 1A-D). PGCLC'lerin besleyicisiz kültüre hazır hale gelmesi yaklaşık 3-4 hafta sürer. PGCLC'ler güçlü sitokinetik aktivite gösterdiğinden, besleyici tabaka üzerinde kümeler oluşturduklarında hücreler arası etkileşimleri zayıftır (Şekil 1E,F). Kümelerden çıkan PGCLC'ler sıklıkla gözlenir (Şekil 1F, kırmızı ok uçları). Besleyici bir katman olmadan, LTC-PGCLC'ler, hücre yoğunluğu yüksek olduğunda bile, çok az hücreler arası yapışma belirtisi olan dağınık hücreler olarak büyür (Şekil 3). Her LTC-PGCLC, aktif sitokinez belirtileri gösteren, yeni izole edilmiş insan PGCLC'nin orijinal morfolojisini korur. PGC benzeri morfolojik özelliklerden sapan hücreler ortaya çıktığında (Şekil 2), PGCLC'lerin tekrarlanan diferansiyel adezyon tekniği ile zenginleştirilmesi genellikle kültür kalitesini iyileştirir. Anormal hücreler devam ederse, PGCLC'lerin CD38-pozitif hücreler olarak ara sıra FACS zenginleştirmesi yardımcı olabilir.
Önceki bir yayın, insan PGCLC'lerini PRDM1-pozitif, TFAP2C-pozitif, ancak SOX2-negatif hücreler41 olarak tanımlamıştır. Ayrıca POU5F1'i de eksprese ederler, ancak öncül iPSC'leri de bu pluripotens belirtecini41 eksprese eder. Genetik olarak indüklenebilir belirteçler, immünofloresan, FAC'ler veya tek hücreli RNA dizisi kullanılarak genişleyen insan PGCLC'lerinin tek hücre düzeyinde verim ve işaretleyici ekspresyon profillerinin en erken fırsatlarda doğrulanması şiddetle tavsiye edilir. Bununla birlikte, bu tür doğrulayıcı analizler olmadan, besleyici hücrelerin varlığında veya yokluğunda insan PGCLC'lerinin verimi ve kalitesi, Şekil 1, Şekil 2 ve Şekil 3'te gösterildiği gibi standart faz kontrast mikroskobu kullanılarak uygun bir şekilde tahmin edilebilir.
Uzun süreli kültür sırasında, LTC-PGCLC'ler, daha önceki tek hücreli RNA-seq verilerinin gösterdiği gibi, aktif olarak çoğalan bir alt popülasyon içeren homojen bir hücre popülasyonunu korur41. Orijinal PGCLC'lerin transkriptomik profili, erken evre PGCLC belirteçleri GATA2 ve GATA3'ün ekspresyonunun hızla kaybolması dışında büyük ölçüde korunur41. İnsan iPSC'lerinde global DNA metilasyon seviyesi yaklaşık% 73'tür ve taze üretilen PGCLC'lerde41 yaklaşık% 64'e düşer. Küresel DNA metilasyon seviyesi, 12 haftalık in vitro genişleme 41'den sonra LTC-PGCLC'lerde yaklaşık T'e düşer. İnsan LTC-PGCLC'lerinin çoğu transkriptomik ve epigenetik özelliği, pluripotent embriyonik germ hücrelerine dönüştürüldüğünde orijinal iPSC'lerdekilere tamamen tersine çevrilir, ancak birkaç damgalama kontrol bölgesindeki alele özgü epigenetik işaretler PGCLC'lerde silinir ve asla geri dönmez41.
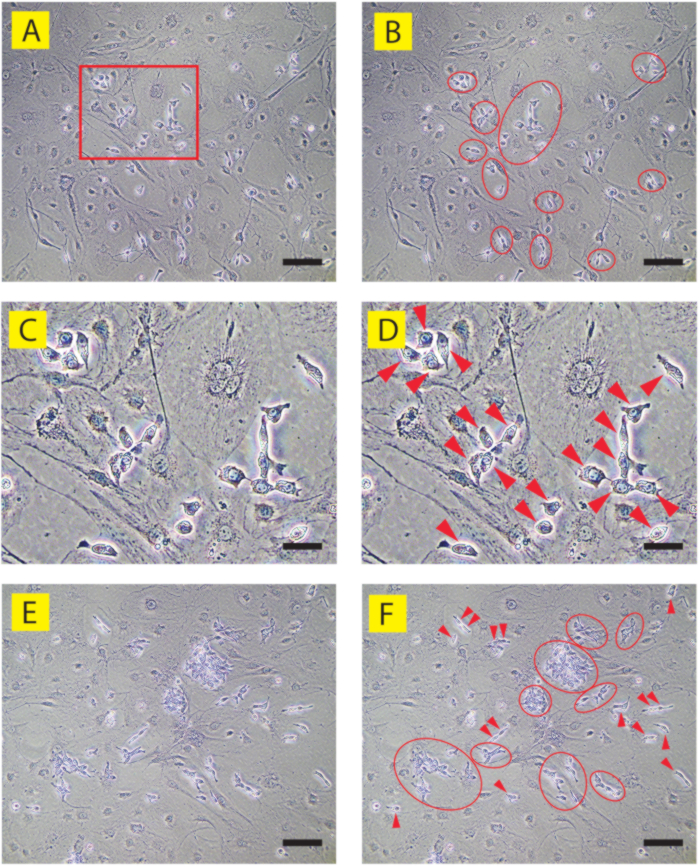
Şekil 1: STO besleyici katmanındaki doğru insan PGCLC'lerinin faz kontrast görüntüleri (insan iPSC klonu 9A13). (A, C, E) sırasıyla (B, D, F) ile açıklanmıştır. (M.S.) 6. Gün kültürü. (A)'nın kırmızı bir dikdörtgenle gösterilen bir kısmı (C, D)'de büyütülür. Çoğu PGCLC, genellikle gevşek kümeler (kırmızı ovaller) oluşturan dağınık hücreler olarak gözlenir. Bireysel PGCLC'ler (kırmızı ok uçları) birbirleriyle yakın temas oluşturmaz ve faz kontrast mikroskobu altında, bozulan, düz ve geniş çapta yayılan STO besleyici hücrelerden çıkıntı yapan hücreler olarak kolayca tanımlanır. (E, F) 15. Gün kültürü. Çoklu PGCLC kümeleri kolayca tanımlanır (kırmızı ovaller), oysa hücreler arası temas hala gevşektir. Bazı PGCLC'ler, kümelerin dışında, genellikle ikilemeler (kırmızı ok uçları) olarak bulunur ve oldukça bozulmuş besleyici katman üzerinde ve arasında rastgele göç ederken aktif çoğalmalarını yansıtır. Ölçek çubukları = 50 μm (A, B, E, F) veya 15 μm (C, D). Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
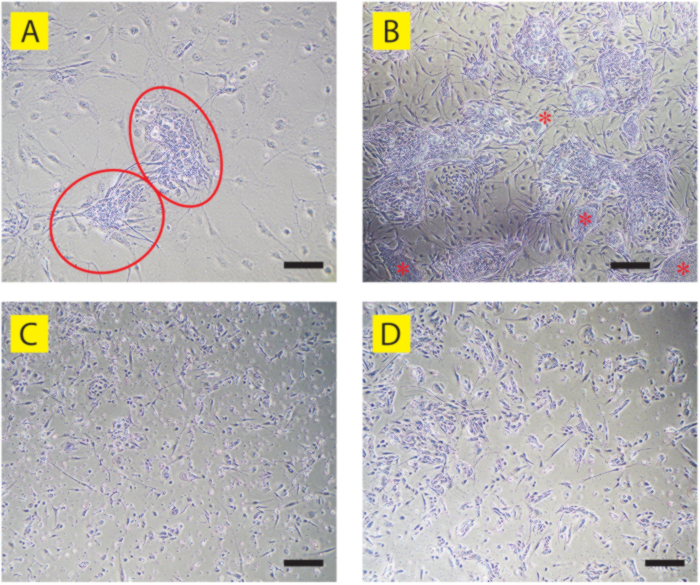
Şekil 2: PGC benzeri özelliklerden sapan insan PGCLC'lerinin faz kontrast görüntüleri. (A) STO besleyici katmanındaki 9A13 PGCLC'lerin 9. gün kültüründe iki anormal PGCLC kümesi (kırmızı ovaller) ortaya çıktı. Doğru PGCLC kümelerinden farklı olarak (Bkz. Şekil 1A-D), hücreler, her bir hücrenin sınırlarını gizleyen güçlü hücreler arası temas gösterir. (B) (A)'da gösterilen insan PGCLC kültürünün 18. gün kültürü. Bazıları öncü insan iPSC'lerine (kırmızı yıldız işaretleri) benzeyen yoğun koloniler gösteren çok sayıda anormal PGCLC kümesi gözlenir. Kümeler arasında bulunan fibroblast benzeri uzun hücrelerin çoğunun aynı zamanda PGCLC'den türetilmiş anormal hücreler olduğunu, çoğu STO besleyici hücrenin ise bozulduğunu ve yerinden çıktığını unutmayın. (C) BME kaplı, besleyici içermeyen kaplarda büyük hücre ölümü ve anormal morfolojiler gösteren LTC-hPGCLC'ler (insan iPSC klonu B6). (D) BME kaplı, besleyici içermeyen kaplarda anormal morfolojilere sahip hücrelere büyük ölçüde sapan LTC-hPGCLC'ler (insan iPSC klonu T548). Bu anormal LTC-hPGCLC'leri Şekil 3B'de gösterilen doğru LTC-hPGCLC'lerle karşılaştırın. Ölçek çubukları = 50 μm (A, B) veya 100 μm (C, D). Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
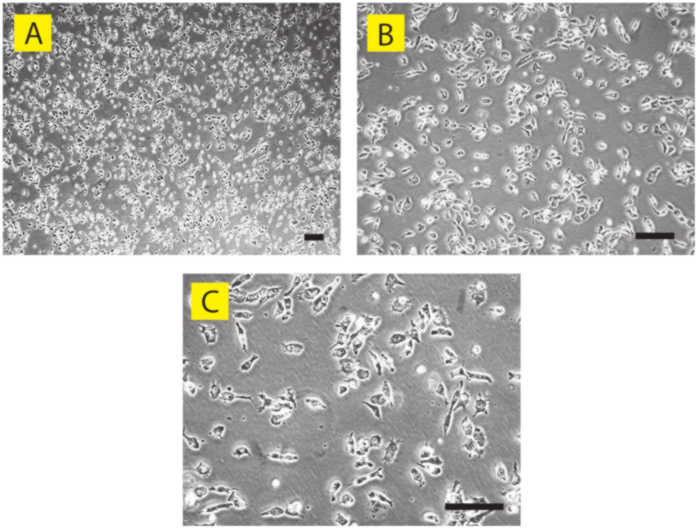
Şekil 3: Besleyicisiz kültür (insan iPSC klonu A4) olarak doğru insan PGCLC'lerinin faz kontrast görüntüleri. BME kaplı kaplarda LTC-PGCLC'lerin 56. gün besleyicisiz kültürü (A) düşük, (B) orta ve (C) yüksek büyütmelerde gösterilir. Hücre yoğunluğu nispeten yüksek olmasına rağmen, her bir PGCLC, hücre bölünmesini yakın zamanda tamamlamış hücreler dışında hücreler arası yakın temaslar oluşturmaz. Aktif sitokinez nedeniyle, bazı PGCLC'ler uzun morfoloji gösterirken diğerleri yuvarlak şekillidir. Ölçek çubukları = 50 μm. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
| PGCLC Bazal Orta | |
| Malzemeler | Hacim |
| Glasgow'un MEM'i | 500 mL |
| Nakavt Serum Replasmanı (KSR) | 75 milyon L |
| MEM NEAA (100X) | 6 milyon L |
| Sodyum Piruvat (100X) | 6 milyon L |
| Penisilin-Streptomisin (100X) | 6 milyon L |
Tablo 1: PGCLC bazal ortamı. PGCLC bazal ortamının bileşimi (593 mL).
| STO orta 1 | |
| Malzemeler | Hacime |
| Dulbecco'nun MEM'i | 445 mL |
| Fetal Buzağı Serumu | 50 mL |
| Penisilin-Streptomisin (100X) | 5 milyon litre |
Tablo 2: STO ortamı 1. STO ortamının bileşimi 1 (500 mL).
| STO orta 2 | |
| Malzemeler | Hacim |
| Dulbecco'nun MEM'i | 47 milyon L |
| Fetal Buzağı Serumu | 2,5 milyon L |
| Penisilin-Streptomisin (100X) | 0,5 mL |
| FGF2 (200 μg/mL) | 2,5 μL |
Tablo 3: STO ortamı 2. STO hücrelerinin (50 mL) artan büyümesi için FGF2 ile desteklenen STO ortamı 2'nin bileşimi.
| MMC-STO Depolama Ortamı | |
| Malzemeler | Hacim |
| Dulbecco'nun MEM'i | 42,5 mL |
| Fetal Buzağı Serumu | 5 milyon litre |
| Dimetil sülfoksit | 2,5 milyon L |
Tablo 4: MMC-STO Depolama Ortamı. MMC ile muamele edilmiş STO besleyici hücrelerin (50 mL) dondurulmuş stoklarını hazırlamak için kullanılan MMC-STO Depolama Ortamının bileşimi.
Tartışma
Bu makalede açıklanan insan PGCLC bakım yöntemi, herhangi bir özel cihaz veya standart dışı malzeme gerektirmeden nispeten basittir. Daha önce yayınlanmış insan PGCLC bakım yöntemleri, hücrelerin PGCLC benzeri durumdan önemli ölçüde sapması nedeniyle sık sık FACS sıralaması gerektirir38. Bu yöntemler ayrıca, kamuya açık ve uluslararası olarak erişilebilir depolar39,40 aracılığıyla kolayca elde edilemeyen standart olmayan bir besleyici katman hücre hattı (m220-5) gerektirir. FCS'nin medyalarına dahil edilmesi, serumun belirli bir partisinin performansına bağımlılık nedeniyle belirsizlik yaratır. Buna karşılık, şu anda sunulan yöntem, serum veya diğer hayvan bazlı reaktifler gerektirmeden yüksek (> %90) canlılığı korurken donmuş olarak saklanabilen milyonlarca insan PGCLC'sini kolayca elde eder. Protokol, birçok genel depoda yaygın olarak bulunan standart STO besleyici katman hücre hattını gerektirir. Yöntem, insan PGCLC'lerini geleneksel hücre hatlarıymış gibi işlemek için benzeri görülmemiş düzeyde kolaylık sağlar. Bu yöntem kullanılarak elde edilen insan PGCLC'lerinin sınırsız tedariki, insan germ hücrelerinin ve/veya gametlerinin deneysel üretimleri, kısırlık (in vitro gametogenez girişimleri dahil) veya germ hücre tümörleri gibi insan germ hücre bozukluklarının değerlendirilmesi ve prospektif germ hücre toksik maddelerinin toksikolojik değerlendirmeleri gibi alanlarda insan PGCLC uygulamalarının kapsamını genişletecektir.
Yöntem, insan PGCLC'lerinden istenmeyen hücre türlerinin ortaya çıkmasını en aza indirmek için S-CM'deki FCS'yi hariç tutar41. Birkaç iPSC klonu, besleyiciye bağımlı aşamada veya sonrasında istenmeyen hücre türleri üretme eğilimindeydi ve bazıları, PGCLC'lerin iki veya üç tur FACS saflaştırmasından geçmek zorunda kaldı. Bununla birlikte, LTC-PGCLC kültürü %50'den fazla birleşme ile kurulduğunda, FACS saflaştırmasının gerekliliği tipik olarak azalır. İnsan PGCLC'lerinin in vitro büyümesi kesinlikle SCF41'in varlığına bağlıdır. LTC-PGCLC'lerin büyüme hızı azalırsa, farklı lotların veya üreticilerin SCF reaktiflerinin test edilmesi önerilir. İnsan PGCLC'leri telomerazı eksprese ettiğinden, in vitro uzun süreli genişleme sırasında yaşlanma yaşamazlar 41. Çeşitli etnik kökenlere sahip erkek ve dişi insan iPSC'lerinden türetilen LTC-PGCLC'leri oluşturmak için başarıyla kullanılmıştır41. Şu anda sunulan yöntemin başarılı uygulama örnekleri arasında erkek insan iPSC klonları A4 ve A5 (Kafkas yenidoğan), PGP1 (Kafkas yetişkin) ve 9A13 (Japon yetişkin) ve dişi iPSC klonları ATCC-BXS0116 (Kafkas) ve ATCC-BXS0115/ACS-1029 (Hispanik) yer alır. Bu yöntemin ve tahmin belirteçlerinin genel uygulanabilirliğinin gelecekteki çalışmalarda belirlenmesi gerekmektedir.
İnsan PGCLC'lerinin ara sıra FACS saflaştırılmasının gerekliliği, öncü iPSC klonuna bağlıdır. Birkaç iPSC klonu, PGCLC'lerin CD38-pozitif hücreler olarak ilk izolasyonundan sonra hiçbir zaman FACS zenginleştirmesi gerektirmezken, bazı PGCLC'lerin, besleyiciye bağlı faz sırasında FACS tarafından üç kata kadar CD38-pozitif hücreler olarak zenginleştirilmesi gerekiyordu. FACS ile zenginleştirilmiş PGCLC'ler, taze hazırlanmış MMC-STO besleyicilerine aşılandı. PGCLC'ler besleyici olmadan BME üzerinde stabil amplifikasyona başladığında, FACS zenginleştirmesi tipik olarak her geçişte gerekli değildir.
PGC benzeri özellikleri koruyan hücrelerin, her geçişte bireysel iPSC klonu için istenmeyen hücre tiplerine sapan hücrelere oranı hakkında ayrıntılı veriler şu anda mevcut değildir. Genel olarak, LTC-hPGCLC kültürü, tekrarlanan geçişlerle 2-4 haftalık kültürden sonra stabilize edilir. İnsan PGCLC'leri istenmeyen hücre türleri üretme eğiliminde olduğunda, istenmeyen hücrelerin çoğu kültür kabına PGCLC'lerden daha güçlü bir şekilde yapışma eğiliminde olduğundan, diferansiyel yapışma yöntemi PGCLC'leri etkili bir şekilde zenginleştirebilir. Tekrarlanan diferansiyel yapışma girişimleri PGCLC zenginleşmesine yardımcı olmazsa, insan PGCLC'lerinin CD38-pozitif hücreler olarak FACS zenginleştirmesi genellikle istenmeyen hücreleri ortadan kaldırır ve bundan sonra saf LTC-hPGCLC yalnızca diferansiyel yapışma yöntemi kullanılarak korunabilir. Overeem ve ark. tarafından açıklanan 2 boyutlu yöntem kullanılarak üretilen uzun vadeli bir insan PGCLC kültürü oluşturmak bazen zor olmuştur. Bununla birlikte, pro-apoptotik genlerin CRISPR nakavtı yoluyla apoptoz direnci kazanan aynı insan PGCLC'leri, LTC-hPGCLC'lere kolayca genişletildi. Bu yöntemin her bir insan iPSC'si ve PGCLC'si ile uyumluluğunun ayrıntılarının gelecekteki çalışmalarda incelenmesi gerekmektedir.
MMC ile muamele edilmiş STO besleyici katman hücreleri başlangıçta yeni izole edilmiş insan PGCLC'lerinin hayatta kalmasını ve çoğalmasını desteklerken, hızla çoğalan PGCLC'ler, STO şartlandırılmış ortam ve bulaşıkların BME kaplaması tarafından desteklendikleri sürece bir besleyici katman olmadan in vitro genişler. Şu anda sunulan yöntemin diğer yaklaşımlara göre benzersiz yararı, LTC-hPGCLC'leri besleyicisiz bir kültür olarak oluşturma yeteneğidir. MMC-STO besleyici katman hücreleri, 5-6 günlük kültürden sonra S-CM ortamında ilk bozulma belirtilerini gösterir. 6-7. günlerde (Şekil 1A-D), besleyici katman, 14-15. günlerde daha belirgin hale gelen mütevazı bir hasar gösterir (Şekil 1E, F). Besleyici hücrelerin yokluğunda, taze izole edilmiş insan PGCLC'lerinin hayatta kalma oranı, görünüşe göre hücre kültürü kaplarının dibine yapışmadaki zayıf verimlilikleri nedeniyle tipik olarak düşüktür. MMC-STO hücreleri tarafından biriktirilen hücre dışı matris proteinlerinin, MMC-STO hücreleri bozulduktan sonra bile PGCLC'lerin yapışmasını ve hayatta kalmasını kolaylaştırdığı tahmin edilmektedir. İnsan PGCLC'lerinin sayısı 14-15. günde görünür kümeler oluşturacak kadar büyüdüğünde, PGCLC'lerin kendileri tarafından biriktirilen hücre dışı matris, onların daha fazla hayatta kalmalarını ve çoğalmalarını desteklemek için yeterli olabilir. Bu varsayımı destekleyen, taze izole edilmiş insan PGCLC'lerinin yüksek yoğunlukta (örneğin, 12 oyuklu bir plakanın kuyusunda 100.000 hücre) besleyici içermeyen, BME kaplı kuyucuklara aşılanması, genellikle LTC-hPGCLC kültürünün başarılı bir şekilde genişlemesini başlatır. Öte yandan, MMC-STO koşullandırılmış ortamın kullanımı, insan PGCLC kültürü boyunca kesinlikle gereklidir ve MMC-STO hücreleri tarafından sürekli koşullandırmanın önemini vurgular.
İstenmeyen hücre türlerinin ortaya çıkmasını bastırmak için BME üzerinde nispeten yüksek yoğunlukta bir LTC-PGCLC kültürü sağlamak önemlidir. PGCLC'lerin %25'ten fazla birleşme noktasında geçirilmesi önerilir. PGCLC'lerin daha düşük yoğunlukta aşılanması, istenmeyen hücrelerin üretilmesi riskini artırır. İnsan PGCLC'lerinin popülasyon ikiye katlanma süresi yaklaşık 4.5 gün41 olduğundan, rutin haftalık geçiş tipik olarak uzun vadeli kültürü sürdürmek için yeterlidir. PGCLC'lerin büyük bir kısmı PGC benzeri özelliklerinden saparsa ve diferansiyel yapışma tekniği veya FACS istenmeyen hücreleri uzaklaştırmak için yetersizse, MMC-STO besleyici tabakasının jelatin kaplama yerine BME kaplı kuyucuklara aşılanmasını düşünün ve/veya MMC-STO hücrelerinin kültürünü PGCLC'lerin aşılanmasından 3 veya 4 gün öncesine kadar uzatın.
İstenmeyen hücre tipleri arasındaki morfolojik ve işaretleyici ekspresyon özellikleri, standart faz kontrast mikroskobu altında kolayca tanımlanabilmelerine rağmen, önemli ölçüde farklılık gösterir (Şekil 2). Toplu büyüme özellikleri veya düzleştirilmiş görünüm gösteren hücreler, PGC benzeri özelliklerden sapar. PRDM1 veya TFAP2C gibi standart PGC belirteçlerinin ekspresyonu, bu tür istenmeyen hücrelerde tipik olarak azalır, ancak istenmeyen hücre popülasyonunu, immünofloresan boyama, FACS veya tek hücreli RNA dizisi ile doğrulanabilen ikna edici PGC benzeri hücre popülasyonundan ayırt etmek için şu anda net kriterler mevcut değildir. Bugün itibariyle, LTC-hPGCLC'lerin genişlemesi sırasında ortaya çıkan PGC olmayan hücre tiplerinin kimlikleri veya alaka düzeyi bilinmemektedir.
Bu makalede sunulan yöntem STO besleyici katman hücrelerini kullansa da, SNL 76/7 hücreleri, şartlandırılmış ortam ve besleyici katmanın üretimi için de kullanılabilir. Bazı PGCLC kültürleri, özellikle kültürü büyük bir aşı boyutuyla (>100.000 hücre) başlatırken, besleyiciye bağımlı kültürden geçmeden uzun süreli kültüre uyum sağlayabildi. Öte yandan, başlatma boyutu 10.000 hücreden küçük olduğunda bir LTC-PGCLC kültürü oluşturmak zor olabilir. STO koşullu ortamın temel bileşenleri daha önce tanımlanmış olmasına rağmen, uzun vadeli PGCLC genişlemesini destekleyen bileşenler henüz tanımlanmamıştır44.
Açıklamalar
Yazarların açıklayacak herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu çalışma, TS'ye R01ES035401, R21ES034468, R21HD110839, R21DA059789 ve R21CA290650 NIH hibeleri tarafından desteklenmiştir. TS aynı zamanda John Templeton Vakfı hibesi 63299'un (PI, John McCarrey, Texas Üniversitesi, San Antonio) alt ödül alıcısıdır. Sunulan çalışmanın bir kısmı James Patrick Stowe Fonu (PI, Philip Saylor, Massachusetts General Hospital) tarafından da desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 6 oyuklu hücre kültürü plakaları | Corning | 3506 | |
| Accutase | Yenilikçi Hücre Teknolojileri | AT104 | -20 °'de saklayın; 6 ay boyunca C. |
| Hücre kültürü ile işlenmiş 10 cm'lik plastik kaplar (P10 kaplar) | Corning | 353003 | |
| Hücre kültürü ile işlenmiş 15 cm'lik plastik kaplar (P15 kaplar) | Corning | 353025 | |
| Kriyojenik şişe | Millipore-Sigma | CLS431417 | |
| KriyoStor CS10 | STEMCELL Teknolojileri | 7930 | 4 &derece'de saklayın. |
| Dimetil Sülfoksit | Fisher Bilimsel | BP231-1 | Oda sıcaklığında saklayın. Hücre kültürü derecesi. |
| Dulbecco; s Fosfat Tamponlu Salin (Ca/Mg içermez) (DPBS) | Gibco | 14190144 | Oda sıcaklığında saklayın. Hücre kültürü derecesi. |
| Dulbecco'nun Minimum Temel Ortamı (Dulbecco'nun MEM'i) | Corning | 10-013-CM | 4 °C'de saklayın. 4,5 g/L glikoz, 1X L-glutamin ve 1X sodyum piruvat içeren ortamı kullanın. |
| Fetal Buzağı Serumu | CPS Serumu | FBS-500 Serisi | -20 °'de saklayın; 12 ay boyunca C. |
| Jelatin | STEMCELL Teknolojileri | 7903 | Suda %0,1. Steril. |
| Glasgow'un Minyum Temel Ortamı (Glasgow'un MEM'i) | Gibco | 11710-035 | 4 &derece'de saklayın. |
| İnsan rekombinant fibroblast büyüme faktörü 2 (FGF2) | PeproTech | 100-18B | -80 °'de saklayın; 3 ay boyunca C. |
| İnsan rekombinant kök hücre faktörü (SCF) | PeproTech | 300-07 | Üreticinin talimatına göre suda sulandırın. -80 °'de saklayın; 3 ay boyunca C. |
| Nakavt Serum Değiştirmeq | Gibco | 10828-028 | -20 °'de saklayın; 6 ay boyunca C. |
| Matrigel (insan embriyonik kök hücre nitelikli) | Corning | 354277 | |
| Minimum Esansiyel Ortam Esansiyel olmayan amino asitler (MEM NEAA) | Gibco | 11140-050 | 4 &derece'de saklayın. |
| Mitomisin-C (suda 10 mM) | Millipore-Sigma | M5353 Serisi | Mitomisin-C'yi (MMC) suda çözün ve filtreyle steril (0,22 mM gözenek boyutu). 100 mL alikotları -20 ° 6 ay boyunca C. Donmuş MMC'yi çözmek için, mor kristalleri sıcak su banyosunda çözün (>60 &derece; C) koyu mor çözeltiye. |
| Penisilin-Streptomisin (100X) | Gibco | 15140-122 | 4 &derece'de saklayın. |
| Plastik santrifüj tüpleri (15 mL) | Corning | 352196 | |
| Plastik santrifüj tüpleri (50 mL) | Corning | 352070 | |
| Sodyum Piruvat (100X) | Gibco | 11360-070 | 4 &derece'de saklayın. |
| STO fare embriyonik fibroblastlar | ATCC | CRL-1503 Serisi | |
| Tripan mavisi (%0,4) | Fisher Bilimsel | T10282 | Oda sıcaklığında saklayın. |
| TrypLE Ekspres | Gibco | 12604-013 | Oda sıcaklığında saklayın. |
| Y-27632 (10 mM suda) | Tocris Hakkında | 1254 | Bir ROCK inhibitörü olan Y-27362'yi 10 mM'ye kadar suda ve filtre sterilinde (0.22 mM gözenek boyutu) çözün. 100 mL alikotları -20 ° 6 ay boyunca C. |
Kaynaklar
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında