Burada, amplifikasyona hazır hücre lizzi, rekombinaz polimeraz amplifikasyonu ve CRISPR/Cas12a tahlilleri kullanarak Lotmaria passim ve Nosema ceranae gibi arı patojenlerinden DNA'yı tespit etmek için basit ve hızlı bir prosedürü açıklıyoruz.
Yöntem makalesi
RPA/CRISPR/Cas12a Sistemine Bağlı Alkalin Lizis Yoluyla Tripanosomatid Parazitlerin ve Nosema ceranae'nin Yerinde DNA Tespiti
Bu makalede
Düzeltme bildirimi
Important: There has been an erratum issued for this article. View Erratum Notice
Özet
Özet
Mikroskobik patojenlerin erken yerinde tespiti, bal arısı kolonilerinin etkili yönetimi ve sağlığı için çok önemlidir. Şu anda, arı patojenlerinin moleküler tespiti için altın standart qPCR veya RT-qPCR'dir. Burada, sahada konuşlandırılabilir DNA patojen tespiti için hızlı, hassas ve uygun maliyetli bir alternatif sunuyoruz. Bu yöntem, işçi arı karınlarının doğrudan, amplifikasyona hazır hücre lizizini rekombinaz polimeraz amplifikasyonu (RPA), raportör probların CRISPR/Cas12a aracılı trans-bölünmesi ve yanal akış testleri yoluyla tespiti birleştirir. Nosema ceranae ve Lotmaria passim ile enfekte olmuş bal arılarında bu protokolü başarıyla doğruladık. Açıklanan protokol, basit bir ısı bloğu kullanılarak veya oda sıcaklığında gerçekleştirilebilir ve potansiyel olarak bal arısının herhangi bir DNA bazlı patojenine veya bağırsak mikrobiyotasına uygulanabilir. Tüm süreç yaklaşık 180 dakika sürer ve 96 parazit kopyası/μL kadar az tespit ederek qPCR ile karşılaştırılabilir bir hassasiyete ulaşır. Sonuç olarak, bu yaklaşım, karmaşık laboratuvar ekipmanlarına ihtiyaç duymadan bal arısı enfeksiyonlarının güvenilir ve hızlı saha teşhisi için umut verici bir araç sunar ve bu da onu yerinde koloni sürveyansı için ideal hale getirir.
Giriş
Arılar, bitkilerin tozlaşmasında rol oynayan kilit türlerdir ve bitki üremesi, biyolojik çeşitlilik ve gıda güvenliği için gereklidir1. Tozlaşma hizmetleri, ekonomik değeri yüksek çok çeşitli mahsullere fayda sağlıyor ve küresel tarıma yılda tahmini 235-577 milyar dolar katkıda bulunuyor. Bununla birlikte, arı popülasyonlarındaki dünya çapındaki düşüş, ekolojik istikrar ve mahsul verimliliği üzerindeki potansiyel sonuçları nedeniyle ciddi endişelere yol açmış ve bu da ağır borçlu yoksul ülkelerde tahmini 4,8-16,3 milyar dolarlık bir kayıpla sonuçlanmıştır2. Arı kaybolma kütlesi, çeşitli faktörler arasında çoklu etkileşimleri içerir: pestisit uygulaması, habitat kaybı, iklim değişikliği ve virüsler, bakteriler, mantarlar ve protistler dahil olmak üzere patojenlerin neden olduğu enfeksiyonlar.
Bu mikroorganizmalar arasında, bağırsağın işleyişini bozan bir mikrosporidian mantar olan Nosema spp. ve tripanosomatid parazitler - özellikle Lotmaria passim - dünya çapında bal arısı kolonilerinde yaygın olarak dağıtılmaktadır3, 4. Son bulgular, L. passim enfeksiyonlarının, asemptomatik olsa bile, bal arılarında bağışıklıkla ilişkili genleri aşağı regüle edebileceğini ve enerji metabolizmasını değiştirebileceğini ve potansiyel olarak ek stres altında dayanıklılıklarını tehlikeye atabileceğini göstermektedir5. Benzer şekilde, Nosema spp. enfeksiyonlar arı ömrünü kısaltır, bağışıklık fonksiyonunu baskılar ve koloninin yiyecek arama dinamiklerini bozarak bal üretiminin azalmasına ve koloni ölümlerinin artmasına neden olur. Ayrıca, hem Nosema spp. hem de tripanosomatidleri içeren koenfeksiyonlar, fizyolojik stresi şiddetlendiren ve konak savunmasını zayıflatan sinerjik etkilere sahip olabilir. Bu bulgular, aynı anda birden fazla patojenin izlenmesinin önemini vurgulamaktadır.
Bu tehditlerin ele alınması, hızlı ve doğru teşhis araçlarının geliştirilmesini gerektirir ve bu da bu patojenlerin biyolojisi, iletimi ve hayatta kalma stratejilerinin daha derin bir şekilde anlaşılmasına bağlıdır6. Bu patojenlerin ışık mikroskobu ve moleküler amplifikasyon dahil olmak üzere geleneksel yöntemlerle tespiti güvenilir olmaya devam etmektedir, ancak bazı sınırlamalarla karşı karşıyadır. Mantar, viral, bakteriyel veya protozoan parazitler için qPCR, RTqPCR (farklı sıcaklıklarda döngü gerektirir) ve Döngü Aracılı Amplifikasyon (LAMP, sabit sıcaklıkta çalışır) gibi izotermal yöntemlerin örnekleri geliştirilmiştir6,7,8,9,10. Bununla birlikte, bu yöntemlerin uygulanması, eğitimli personel ve iyi donanımlı laboratuvar tesisleri ile birlikte özel ekipman gerektirir ve bu da saha uygulamaları ve büyük ölçekli izleme için pratikliklerini kısıtlar. Bu sorunları ele almak için, yeni moleküler teknikler geliştirilmiştir - DNA hedeflerinin rekombinaz polimeraz amplifikasyonu (RPA) ile amplifikasyonu, CRISPR / Cas12a tabanlı tespit ile birlikte - hızlı, spesifik ve hassas bir yaklaşım. Yöntem izotermal olarak çalışır ve Shao ve ark.11 ve Xiao ve ark.12'ye göre, yerinde veya bakım noktası teşhisi için uygun hale getiren görsel sonuçlar üretir.
RPA, tipik olarak 37 °C ile 42 °C arasında sabit bir sıcaklıkta çalışan basit ve hızlı bir DNA amplifikasyon yöntemidir. Termal döngüye ihtiyaç duymadan DNA'yı amplifiye etmek için rekombinaz enzimlerine, tek sarmallı DNA bağlayıcı proteinlere ve iplikçik yer değiştiren bir polimeraza dayanır. RPA, hızı, minimum ekipman gereksinimleri ve ham numunelerle uyumluluğu nedeniyle özellikle yerinde test ve saha teşhisi için uygundur 11,12,13. Spesifikliği artırmak için, RPA ürünü, aynı sıcaklık aralığında da çalışan Cas12a endonükleaz kullanılarak tespit edilebilir. Cas12a, Cas12a'yı amplifiye edilmiş hedef diziye yönlendiren ve DNA'daki tamamlayıcı diziye bağlanan kısa bir RNA olan bir CRISPR kılavuz RNA'sına (gRNA) bağlanır. Bağlandıktan sonra, Cas12a aktive olur ve özellikle tek sarmallı DNA'ya (ssDNA) karşı kollateral (trans) bölünme aktivitesi sergiler. Bu, yanal akış şeridi okumaları da dahil olmak üzere floresan veya görsel sinyaller üretebilen floroforlar veya biyotin ile etiketlenmiş ssDNA raportör moleküllerinin kullanılmasını sağlar. RPA ve CRISPR/Cas12a birlikte, hızlı, hassas ve saha veya kaynak sınırlı ortamlarda kullanıma uygun güçlü bir moleküler tanı platformu oluşturur12.
Bu moleküler tanı yaklaşımının pratikliğini daha da artırmak için, arı karınlarının sodyum hidroksit (NaOH) lizisinedayalı basitleştirilmiş bir amplifikasyona hazır hücre lizisi (ARCL) yöntemi de uyguladık 11,14 ve kapsamlı numune hazırlama ve laboratuvar reaktiflerine olan ihtiyacı ortadan kaldırdık. Bu hızlı nükleik asit ekstraksiyon tekniği, izotermal amplifikasyon ve CRISPR/Cas12a algılama sistemi ile birleştiğinde, hem zamanı hem de maliyeti önemli ölçüde azaltan, sahada konuşlandırılabilir bir iş akışı sağlar. Daha da önemlisi, tahlil, arılarda patojen tespiti için mevcut altın standart olan qPCR ile karşılaştırılabilir kaliteyi, yüksek hassasiyeti ve özgüllüğü korur.
İşte bal arılarında Nosema ceranae ve L. passim tespiti için bu metodolojiyi başarıyla uyguladık (Şekil 1). Bu yöntemi standart qPCR testleriyle karşılaştırdık ve doğal olarak enfekte olmuş numuneler kullanarak performansını doğruladık. Bulgularımız, bu yaklaşımın bal arısı sağlığının saha tabanlı izlenmesi için pratik ve güvenilir bir alternatif olduğunu ve arıcılıkta büyük ölçekli gözetim ve erken müdahale çabaları için güçlü bir potansiyele sahip olduğunu göstermektedir.
Protokol
Tüm prosedürler, omurgasızlarla çalışmak ve kavram kanıtı için gereken en düşük sayıda arı kullanmak için kurumsal ve ulusal yönergelere uygun olarak yürütülmüştür. Bal arıları, havalandırmalı ve uygun sıcaklıktaki özel kovan kutularında taşındı ve analize kadar -20 °C'de laboratuvarda saklandı.
1. HotSHOT alkali hücre lizisi
- Çözelti hazırlama
- 100 mL'lik HotSHOT Lysis tampon hazırlığı
- 99.993 mg NaOH ve 8.32 mg EDTA tartın, 90 mL damıtılmış su ekleyin ve karıştırın. PH'ı 12'ye ve hacmi 100 mL'ye ayarlayın; otoklav.
- 40 mM Tris-HCl, pH 5
- 484.544 mg Tris'e 90 mL deiyonize su ekleyin, HCl ile pH'ı 5'e ayarlayın ve hacmi 100 mL'ye getirin.
- 100 mL'lik HotSHOT Lysis tampon hazırlığı
- Lizis protokolü
- Steril bir neşter kullanarak arının karnını inceleyin ve diseke edilen dokuyu 1.5 mL'lik bir mikrosantrifüj tüpüne aktarın.
NOT: Patojen tespiti için sadece karın bölgeleri kullanıldı ve kalan vücut parçaları atıldı. - 400 μL HotSHOT tamponu ekleyin, tek kullanımlık bir havaneli kullanarak dokuyu yumuşatın ve girdaplama yoluyla daha da homojen hale getirin.
NOT: Havaneli, malzemenin gece boyunca 0.1 N NaOH çözeltisi içinde inkübe edilmesi, ardından çift deiyonize su ile durulanması, ardından bir otoklav döngüsü ve ardından bir inkübatörde kurutulması yoluyla dekontamine edilirse yeniden kullanılabilir. - Hücreleri parçalamak için homojenatı 95 ° C'de 10 dakika inkübe edin. Kuluçka işleminden sonra, tüpü hemen soğuması için buzun üzerine yerleştirin.
- Reaksiyonu nötralize etmek için, eşit hacimde (400 μL) 40 mM Tris-HCl ekleyin, bu da çözeltide 20 mM Tris-HCl'lik bir nihai konsantrasyon ile sonuçlanır.
NOT: Bu lizis prosedürü Şekil 2'de gösterilmiştir.
- Steril bir neşter kullanarak arının karnını inceleyin ve diseke edilen dokuyu 1.5 mL'lik bir mikrosantrifüj tüpüne aktarın.
2. RPA ile izotermal amplifikasyon
NOT: Astarların tasarımı, diğer astar tasarım araçları kullanılabilmesine rağmen, eprimer3 yazılım aracı (https://www.bioinformatics.nl/cgi-bin/emboss/eprimer3) yardımıyla yapılmıştır.
- Çalışma çözümlerinin hazırlanması
- RPA astar çözümleri
- Üreticinin talimatlarına göre 100 μM konsantrasyonda stok çözeltileri hazırlayın. Örneğin, 100 μL Dietil Pirokarbonat (DEPC) ile arıtılmış suda 10.0 nmol liyofilize astarı sulandırın ve -20 °C'de saklayın. Stoku 1:10 seyrelterek 10 μM konsantrasyonda çalışma çözeltileri hazırlayın; 90 μL DEPC ile arıtılmış suyu 10 μL 100 μM stok çözeltisi ile 0,2 mL'lik bir tüpte karıştırın. Bu solüsyonları -20 °C'de saklayın.
- RPA astar çözümleri
- RPA protokolü
- Yapılacak reaksiyon sayısına göre ana karışımı hazırlayın. Hem negatif bir kontrol (ARCL'yi DEPC ile arıtılmış su ile değiştirerek) hem de patojen DNA kullanarak pozitif bir kontrol (bu örnekte, hücre kültüründen elde edilen DNA L. passim promastigotlar ve Nosema spp. için pozitif arılar) dahil edin. (mikroskopi ile tespit edilen sporlar)) (Tablo 1).
NOT: RPA master karışımını her zaman buz üzerinde hazırlayın ve kontaminasyonu önlemek için filtre uçlarını kullanın. - Her 0.2 mL'lik tüpe 46.5 μL'lik bir ana karışım alikotu aktarın.
- Tablo 2'de belirtilen hacimleri takip ederek tüplerin kapaklarına magnezyum asetat (MgOAc) ve şablon DNA ekleyin. İçeriği karıştırmak ve RPA reaksiyonunu başlatmak için tüpleri kısaca santrifüjleyin.
NOT: Daha iyi tekrarlanabilirlik için, kullanmadan önce tüm bileşenleri kısaca vorteksleyin ve santrifüjleyin. Reaksiyonu doğrulamak için her partiye pozitif ve negatif kontroller dahil edilmelidir. - RPA amplifikasyon reaksiyonu için numuneleri 39 °C'de 40 dakika inkübe edin.
NOT: İnkübasyondan sonra, RPA reaksiyonları, bölüm 3'te açıklanan aşağı akış tespiti (örneğin, CRISPR/Cas12a tabanlı tahliller) için doğrudan kullanılabilir.
- Yapılacak reaksiyon sayısına göre ana karışımı hazırlayın. Hem negatif bir kontrol (ARCL'yi DEPC ile arıtılmış su ile değiştirerek) hem de patojen DNA kullanarak pozitif bir kontrol (bu örnekte, hücre kültüründen elde edilen DNA L. passim promastigotlar ve Nosema spp. için pozitif arılar) dahil edin. (mikroskopi ile tespit edilen sporlar)) (Tablo 1).
3. CRISPR / Cas12a ile patojen DNA tespiti
NOT: RPA sonrası tespit farklı şekillerde gerçekleştirilebilir. Bu protokolde, floresan (FAM-TTTTTTTT-MGB) ve immünokromatografik şeritler (Biotin-TTTTTTTT-FITC) ile algılamayı detaylandıracağız.
Tüm prosedürleri temiz, DNA içermeyen bir alanda (örneğin, özel PCR alanı) gerçekleştirin. Çalışma yüzeylerini ve pipetleri %0,5 çamaşır suyu ve ardından %70 etanol ile temizleyin. Daima filtre uçları kullanın ve eldiven giyin. DNA'yı veya amplifiye edilmiş materyali reaktif hazırlama bölgesinden ayrı bir alanda ele alın. Tüm reaktifleri buz üzerinde çözün ve hazırlık boyunca soğuk koşulları koruyun.
- Çalışma çözümlerinin hazırlanması
- crRNA (Genetik Yapı)
NOT: Nosema ceranae ve Lotmaria passim crRNA'nın tasarımı, Ökaryotik Patojen CRISPR kılavuzu RNA/DNA Tasarım Aracı (EuPaGDT) http://grna.ctegd.uga.edu/ kullanılarak gerçekleştirilmiştir. Özelleştirilmiş crRNA tasarımı için GPP sgRNA Designer (https://portals.broadinstitute.org/gpp/public/analysis-tools/sgrna-design) veya CHOPCHOP (https://chopchop.cbu.uib.no/) gibi diğer yazılımlar kullanılabilir.- 100 μM'lik bir crRNA stok çözeltisi hazırlamak için, her liyofilize crRNA'nın 10 nmol'ünü 100 μL DEPC ile arıtılmış su ile sulandırın ve -20 °C'de saklayın. 1 μM'lik bir çalışma çözeltisi hazırlamak için, 100 μM'lik stok çözeltisinin 1 μL'sini 0,2 mL'lik bir tüpte 99 μL DEPC ile arıtılmış su ile karıştırarak 1:100 seyreltme gerçekleştirin (Şekil 3).
NOT: Her iki çözelti de -20 °C'de saklanmalıdır.
- 100 μM'lik bir crRNA stok çözeltisi hazırlamak için, her liyofilize crRNA'nın 10 nmol'ünü 100 μL DEPC ile arıtılmış su ile sulandırın ve -20 °C'de saklayın. 1 μM'lik bir çalışma çözeltisi hazırlamak için, 100 μM'lik stok çözeltisinin 1 μL'sini 0,2 mL'lik bir tüpte 99 μL DEPC ile arıtılmış su ile karıştırarak 1:100 seyreltme gerçekleştirin (Şekil 3).
- Cas12a hazırlığı
NOT: Cas12a, 1 μM veya 100 μM konsantrasyonlarda sağlanabilir.- 100 μM'de verilirse, kullanmadan önce 1 μL 100 μM Cas12a enzimini kitte sağlanan 99 μL seyreltici ile karıştırarak 1 μM'lik bir çalışma çözeltisine seyreltin (1:100 seyreltme, Şekil 3).
NOT: Cas12a enzim konsantrasyonu, numune tipine bağlı olarak ayarlanabilir. Enzim, gliserol bazlı bir seyrelticide depolandığından, potansiyel inhibitör etkilerden kaçınmak için eklenen enzim hacminin toplam reaksiyon hacminin %20'sini aşmamasını sağlamak önemlidir.
- 100 μM'de verilirse, kullanmadan önce 1 μL 100 μM Cas12a enzimini kitte sağlanan 99 μL seyreltici ile karıştırarak 1 μM'lik bir çalışma çözeltisine seyreltin (1:100 seyreltme, Şekil 3).
- FAM ve Biotin prob çözeltilerinin hazırlanması
NOT: FAM probu liyofilize formda sağlanır.- 100 μM'lik bir stok çözeltisi hazırlamak için, 1 nmol prob başına 1 μL DEPC ile arıtılmış su ekleyerek probu yeniden süspanse edin (örneğin, 102 nmol için 102 μL DEPC ile arıtılmış su ekleyin). Stok çözeltisini -20 °C'de saklayın. Algılama mastermiksinde kullanım için, 10 μM'lik bir çalışma çözeltisi elde etmek için stoğu 1:10 (90 μL DEPC ile arıtılmış suyu 10 μL 100 μM FAM ile) seyreltin (Şekil 3).
- crRNA (Genetik Yapı)
- CRISPR/Cas12a algılama protokolü
- Floresan tabanlı algılama (FAM probu)
- 1.5 mL'lik bir mikrosantrifüj tüpünde, amplikonlar hariç olmak üzere reaksiyon karışımını Tablo 3'te açıklandığı gibi hazırlayın.
- Bir girdap kullanarak iyice karıştırın ve karışımı PCR tüplerine dağıtın.
- Ardından, her tüpe 4 μL RPA amplikonu (adım 2.2'de açıklanmıştır) ekleyin.
- Reaksiyonları 37 ° C'de 120 dakika boyunca floresan okuma özelliğine sahip bir termodöngüleyicide inkübe edin ve her dakika floresan kaydedin.
- İsteğe bağlı: İnkübasyonun sonunda, reaksiyonları 0.2 mL'lik tüplere aktarın ve görüntüleme için bir jel dokümantasyon sistemi kullanarak görselleştirin.
- Yanal akış testinde Biotin probu kullanılarak tespit
- 1.5 mL'lik bir mikrosantrifüj tüpüne Tablo 4'te gösterilen bileşenleri ekleyin.
- Karışımı bölüm 3.2.1'de anlatıldığı gibi yapın, karıştırın ve bir PCR plakasına dağıtın. Son olarak, ilgili kuyucuklara 4 μL amplikon ekleyin.
- 37 ° C'de bir termosiklerleyicide (floresan okuması olmadan) veya termal blokta 120 dakika inkübe edin.
- Numuneleri 0.2 mL'lik tüplere aktarın ve tespiti immünostriplerle gerçekleştirin. Bunu yapmak için, her tüpe 50 μL çalışma tamponu ve 10 μL reaksiyon karışımı ekleyin ve şeridi doğrudan tüpe yerleştirin. Oda sıcaklığında 15 dakika inkübe edin ve Şekil 3'te gösterildiği gibi 10 dakika daldırdıktan sonra sonuçları okuyun.
- Floresan tabanlı algılama (FAM probu)
Sonuçlar
Burada, RPA amplifikasyonu ve floresan ve/veya yanal akış yaklaşımlarıyla CRISPR/Cas12a tabanlı algılama ile birleştirilmiş işçi arı karınlarının alkalin lizizini kullanan hızlı bir yerinde yöntem tanımladık. Tam iş akışının şeması Şekil 3'te temsil edilmektedir ve işçi arı karınlarının HotSHOT alkali lizizinin şeması Şekil 4'tedir. RPA/CRISPR/Cas12a testinin temsili sonuçları Şekil 5'te gösterilmektedir. L. passim ve N. ceranae'yi tespit etmek için, FAM etiketli bir prob kullanılarak bağıl floresan birimlerini (RFU'lar) ölçmek için bir termosikler kullanıldı (Şekil 4A). RPA reaksiyonları 10 ng DNA kullanılarak gerçekleştirildi ve floresan verileri bir grafikte çizildi (Şekil 4B). Testin son aşamasında, konik tüplerdeki numuneler bir jel görüntüleme sistemi kullanılarak fotoğraflandı (Şekil 4C). Biyotin etiketli bir prob ile tespit için, numuneler bir termoblok içinde inkübe edildi (Şekil 4A); algılama çözeltisi, üreticinin talimatlarına göre hazırlanmış ve bir yanal akış şeridi üzerine uygulanmıştır (Şekil 4B, C). Yöntem, her iki bal arısı patojeninin de başarılı bir şekilde tespit edilmesiyle sonuçlandı.
RPA reaksiyonlarının etkinliğini belirlemek için, bu yöntemi, referans verilen kit kullanılarak bal arılarından saflaştırılmış DNA kullanarak standart qPCR ile karşılaştırdık (Malzeme Tablosuna bakınız). Toplam 32 arı örneği, her iki yöntem için de L. passim'in β-tübülin genini hedefleyen primerlerle test edildi ve daha sonra floresan probların CRISPR / Cas12a trans-bölünmesi ile tespit edildi. Özellikle, sonuç olarak, 12 örnekte qPCR pozitif bulunurken, RPA/CRISPR/Cas12a'da 16 örnekte L. passim tespit edildi (Şekil 5A). Bu, RPA reaksiyon performansının, altın standart DNA amplifikasyon yöntemi olarak PCR'den daha hassas olduğunu gösterir.
Benzer şekilde, patojen modeli olarak L. passim DNA için CRISPR/Cas12a tespitine bağlı qPCR ve RPA için tespit limitini (LOD), 66 ng ila 6 fg arasında değişen L . passim DNA'nın seri dilüsyonlarını kullanarak belirledik. qPCR, yaklaşık 96 parazite karşılık gelen 6 pg kadar az tespit edildi (Şekil 5B). Buna karşılık, RPA için LOD 96 parazite karşılık geldi (Şekil 5C, D).
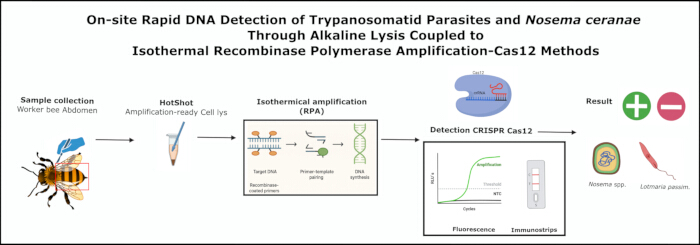
Şekil 1: Bal arılarında RPA amplifikasyonu ve Cas12 tespit yöntemleri ile birleştirilmiş HotSHOT alkali lizizinin genel iş akışı. Kısaltmalar: RPA = rekombinaz polimeraz amplifikasyonu; CRISPR = kümelenmiş düzenli aralıklı kısa palindromik tekrarlar; Cas = CRISPR ile ilişkili protein. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
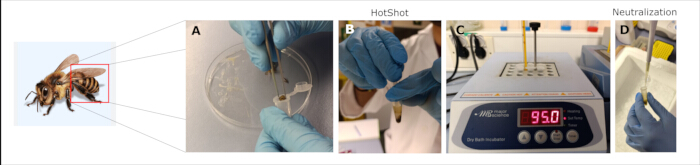
Şekil 2: HotSHOT tamponu ile amplifikasyona hazır hücre lizisinin işlenmesi. (A) Bal arısının karnını bir neşterle kesin ve bir santrifüj tüpüne koyun; (B) havaneli ile 400 μL HotShot ile maserasyon yapın; (C) 95 ° C'de bir termoblok üzerinde 10 dakika inkübe edin; ve (D) 400 μL 40 mM Tris-HCl ile nötralize edilir. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
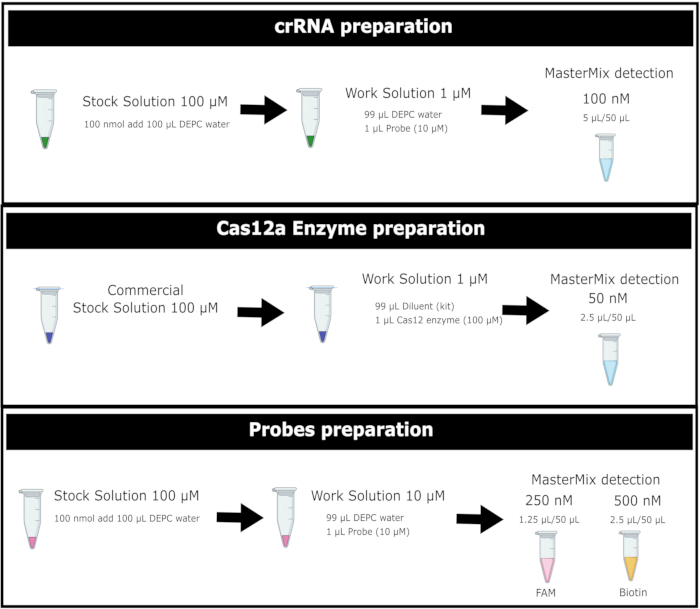
Şekil 3: Cas12a enzimi ve FAM ve Biotin etiketli raportör prob çözeltilerinin hazırlanması için genel iş akışı. Kısaltmalar: DEPC-su = Dietil Pirokarbonat ile muamele edilmiş su; crRNA= RNA CRISPR; Cas12 = CRISPR ile ilişkili protein türü. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
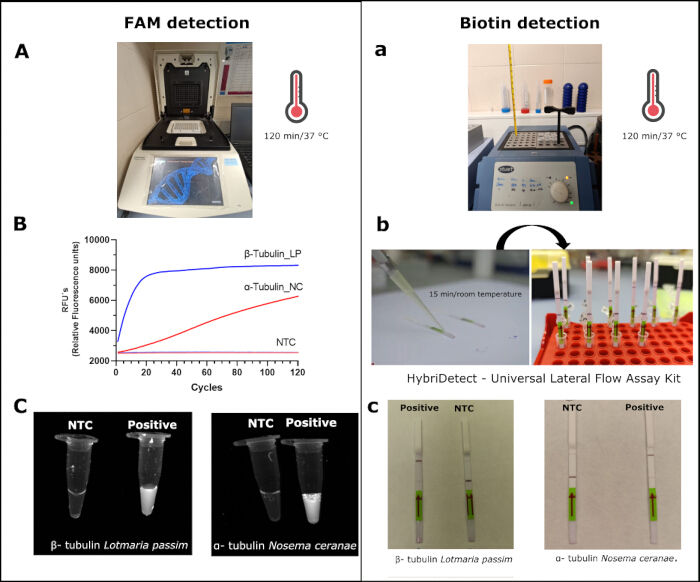
Şekil 4: Lotmaria passim ve Nosema ceranae'nin CRISPR/Cas12a yöntemi ile FAM ve biotin probları ile tespiti. FAM tespiti için, (A) numuneler bir termocycler'da inkübe edilir; (B) L. passim ve N. ceranae'nin bağıl floresan birimleri (RFU'lar); (C) Aynı numunelerin bir fotodokümantasyon sistemi altında görselleştirilmesi. Biyotin testlerinde, (a) bir termo blok içinde inkübe edilen bir numune; (b) numuneler kitten bir immünostripe eklenmiştir (bkz. Malzeme Tablosu); (c) İnkübasyondan sonraki sonuçlar. Kısaltmalar: LP= Lotmaria passim; NC= Nosema ceranae; NTC= şablon kontrolü yok; RFU: bağıl floresan birimleri Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
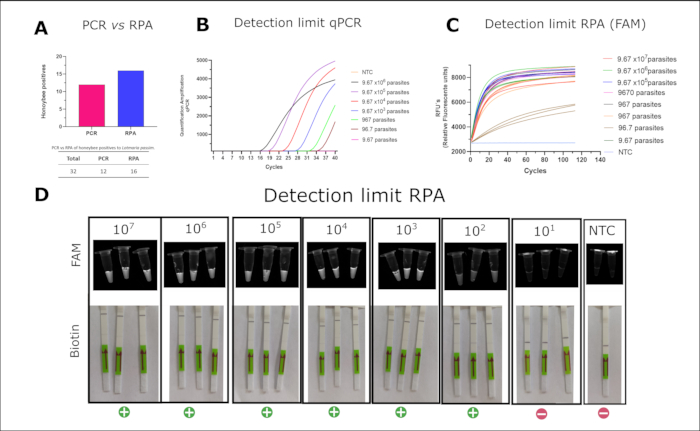
Şekil 5: qPCR ve RPA arasındaki karşılaştırma ve Lotmaria passim'in tespit sınırı. (A) Konvansiyonel qPCR ve RPA kullanılarak bal arısı örneklerinde L. passim tespiti. (B) SsoFast EvaGreen kullanılarak L. passim'in qPCR tespit limiti. (C) FAM etiketli bir prob ile CRISPR/Cas12a kullanılarak L. passim'in tespit sınırı; (D) aynı CRISPR / Cas12a tespitinin ( C'den) bir jel görüntüleme sistemi (üst sıra) altında görselleştirilmesi ve biyotin etiketli bir prob (alt sıra) ile CRISPR / Cas12a kullanılarak karşılık gelen yanal akış sonuçları. Kısaltmalar: RPA = rekombinaz polimeraz amplifikasyonu; qPCR= kantitatif polimeraz zincir reaksiyonu. Bu rakamın daha büyük bir sürümünü görüntülemek için lütfen buraya tıklayın.
| Reaktif | Son Konsantrasyon | 10 μL | 50 μL |
| 2x Reaksiyon Tamponu | 1 katı | 5 μL | 25 μL |
| dNTP'ler (10 mM) | 1,8 milyon | 1,8 μL | 9 μL |
| 10x Temel E-Karışım | 1 katı | 1 μL | 5 μL |
| İleri Astar (10 μM) | 480 milyon | 0,5 μL | 2,4 μL |
| Ters Astar (10 μM) | 480 milyon | 0,5 μL | 2,4 μL |
| 20x Çekirdek Reaksiyon Karışımı | 1 katı | 0,5 μL | 2,5 μL |
| DEPC Suyu | -- | 0,7 μL | 3,7 μL |
Tablo 1: Nihai hacimleri 10 μL ve 50 μL olan RPA için Mastermix bileşenleri ve karşılık gelen çalışma konsantrasyonları:
| Reaktif | Son konsantrasyon | 10 μL reaksiyon | 50 μL reaksiyon |
| 280 mM MgOAc | 1,8 milyon | 0,5 μL | 2,5 μL |
| DNA | 10-0.1 ng | 1 μL | 2 μL |
Tablo 2: RPA'nın bir reaksiyonunda numune başına eklenecek reaktiflerin hacmi
| Reaktif | [Stok] | [Final] | 1 adet (μL) |
| Cas12a enzimi | 1 μM | 50 nM | 2.5 |
| cRNA (İngilizce) | 1 μM | 100 nM | 5 |
| FAM probu | 10 μM | 250 nM | 1.25 |
| NEB tamponu 10x | 10 katı | 1 katı | 5 |
| RPA yükseltici | - | - | 4 |
| Su | - | - | 32.25 |
| Toplam | 50 |
Tablo 3: CRISPR/Cas 12a yöntemi ile FAM tespitinin bir karışımını yapmak için reaktiflerin konsantrasyonları.
| Reaktif | [Stok] | [Final] | 1 adet (μL) |
| Cas12a enzimi | 1 μM | 50 nM | 2.5 |
| cRNA (İngilizce) | 1 μM | 100 nM | 5 |
| Biyotin probu | 10 μM | 500 deniz mili | 2.5 |
| NEB tamponu 10x | 10 katı | 1 katı | 5 |
| RPA yükseltici | - | - | 4 |
| Su | - | - | 31 |
| Toplam | 50 |
Tablo 4: CRISPR/Cas 12a yöntemi ile biyotin tespitinin bir karışımını yapmak için reaktif konsantrasyonları.
Tartışma
Bu çalışmada, bal arısı patojenlerini tespit etmek için pratik bir moleküler tanı protokolü geliştirdik ve doğruladık. İş akışı, amplifikasyona hazır hücre lizizini, RPA kullanarak izotermal amplifikasyonu ve CRISPR/Cas12a aracılığıyla son derece spesifik algılamayı entegre eder. Değerlendirilen kimyasal DNA ekstraksiyon yöntemleri arasında HotSHOT alkali lizis protokolü maliyet, hız ve basitlik açısından önemli avantajlar sunar. Ticari kitlere ihtiyaç duymadan amplifikasyona hazır lizatları verimli bir şekilde üretir. Bu yöntemin, bal arılarındapatojen tespiti de dahil olmak üzere çeşitli uygulamalarda güvenilir olduğu kanıtlanmıştır 14,15,16,17,18. Yüksek sıcaklıktaki alkali koşullar, hücre zarlarını ve DNA zincirleri arasındaki hidrojen bağını bozarak, aşağı akış amplifikasyonu için uygun tek sarmallı DNA'yı serbest bırakır. Potansiyel sınırlamalar PCR inhibitörlerinin varlığını veya suboptimal nötralizasyonu içermesine rağmen, alkali lizizin arke19, bakteri20 ve mantar14 gibi çeşitli organizmalarda etkili bir şekilde çalıştığı gösterilmiştir ve PCR, qPCR ve LAMP21 ve RPA12 gibi izotermal yöntemlerle uyumludur.
Elimizde, RPA/CRISPR/Cas12a sistemi güçlü özgüllük ve tatmin edici hassasiyet gösterdi. Her patojende korunmuş bölgeleri hedefleyen crRNA'ların kullanılması, konakçı DNA'ya veya ilgisiz mikroorganizmalara çapraz reaktivite olmaksızın doğru tanımlamaya izin verdi. Bu sistemin bal arılarında daha önceki uygulamalarında, Deforme Kanat Virüsü tip A veB için yaklaşık 6,5 × 10² ve 6,2 × 101 kopya/μL tespit limitleri elde edilmiştir 8,12. Bununla birlikte, bu tahliller, hızlı RNA ve/veya DNA ekstraksiyonu ile saha içi koşullar için optimize edilmemiştir. Bu çalışmada, yöntemi özellikle DNA patojenleri (N. ceranae ve L. passim) için uyarladık ve alanla uyumlu tespiti sağladık.
Sonuçlarımız, RPA/CRISPR/Cas12a'nın, muhtemelen ham lizatlarda bile etkili olan CRISPR/Cas12a kollateral bölünme aktivitesini kullanan geliştirilmiş sinyale bağlı olarak, pozitif numuneleri tanımlamada (16'ya karşı 12) geleneksel PCR'den daha iyi performans gösterdiğini göstermektedir. PCR tabanlı yöntemlere göre duyarlılıktaki iyileşme daha önce Yersinia enterocolitica22, Diaporthe aspalathi23 veya Vibrio vulnificus24 gibi farklı patojen modellerinde bildirilmiştir. Ayrıca, kantitatif analiz, laboratuvar koşullarında (~ 96 parazit kopyası / μL) RPA / CRISPR / Cas12a ve qPCR'nin eşdeğer bir tespit limitini ortaya çıkardı. Bu, crRNA tarafından sağlanan ek dizi tanıma nedeniyle TaqMan qPCR ile karşılaştırılabilir özgüllüğe sahip yöntemin iyi bir performansı anlamına gelir. Ayrıca, tahlil yalnızca minimum ekipman gerektirir, bir termodöngüleyiciye veya floresan okuyucuya bağlı değildir ve daha önce diğer patojenler için geliştirildiği gibi yanal akış şeritleri kullanılarak görselleştirilebilir 25,26. Bu, yorumlamayı basitleştirir ve testi saha teknisyenleri ve arıcılar için son derece erişilebilir hale getirir.
Mevcut protokol sağlam sonuçlar veriyor, ancak daha fazla iyileştirme yapmak mümkün. Tahlili diğer DNA bazlı arı patojenlerini hedef alacak şekilde uyarlamak, yalnızca RPA primerlerinin ve crRNA'ların yeniden tasarlanmasını gerektirecektir. RNA virüsleri için protokol, bal arılarında DWV-A ve DWV-B dahil olmak üzere çeşitli viral bulaşıcı hastalıklar 26,27,28 için daha önce gösterildiği gibi bir ters transkripsiyon adımı (RT-RPA) içerecek şekilde genişletilebilir15. Ek olarak, şu anda yaklaşık 180 dakika olan toplam tahlil süresi, her adımın zamanlamasını azaltmak için protokol optimizasyonu yoluyla muhtemelen azaltılabilir. Diğer bir alternatif, tüm RPA/CRISPR/Cas12a reaktiflerini tek bir reaksiyonda birleştiren tek kaplı RPA/CRISPR/Cas12a olabilir. Bu hepsi bir arada metodoloji, çok çeşitli viral ve bakteriyel patojenlerin tespiti için başarıyla uygulanmıştır 25,26,29. Bunun yanı sıra, ssDNA probları Cas12a tespiti için genişletilmiş ve popüler hale getirilmiştir, bazı çalışmalar, dsDNA30'un stabilitesi nedeniyle test edilmesi yararlı olabilecek trans-bölünme çift sarmallı DNA (dsDNA) problarının Cas12a'nın kapasitesini bildirmiştir. Bu, 30 dakikanın altında bir sonuç alma süresine yol açacak ve saha uygulanabilirliğini daha da artıracaktır. RPA ve CRISPR reaktiflerinin liyofilize edilmesi ayrıca reaktif stabilitesini artıracak ve soğuk zincir ihtiyacını ortadan kaldırarak uzak veya düşük kaynaklı ortamlar için uygunluğu artıracaktır. Liyofilize reaktifler kullanılarak RPA/CRISPR/Cas12a'nın başarılı performansı, Actinobacillus pleuropneumonia31 ve SARS-Cov2 26 dahil olmak üzere solunum yolu bulaşıcı virüslerinin 28,32 tespiti için başarıyla belirlenmiştir.
Özetle, bu çalışma bal arısı patojen tespiti için tamamen sahada, uygun maliyetli ve taşınabilir bir moleküler tanı platformu sunmaktadır. Bu metodoloji, mevcut haliyle, yaklaşık 180 dakika sürecek, ancak toplam zamanlaması hala daha fazla iyileştirmeye tabi tutulabilir. Kavram kanıtlama hedefleri olarak L. passim ve Nosema spp.'ye odaklanmış olsak da, sistem modülerdir ve çok çeşitli DNA bazlı arı patojenlerine (yani, Paenibacillus larvaları veya Melisococcus plutonious) ve ayrıca ilgilenilen kommensal simbiyontları izlemek için uyarlanabilir. Bu yaklaşım, moleküler tanıya erişimi geleneksel laboratuvar ortamlarının ötesine genişletir ve arıcılıkta erken müdahale stratejilerini destekler. Daha geniş anlamda, sonuçlarımız CRISPR tabanlı teknolojilerin sahaya hazır teşhis uygulamalarında uygulanabilirliğini göstermektedir.
Açıklamalar
Yazarların açıklanacak herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu çalışma, Endülüs hükümetinin tarımsal verimlilik ve sürdürülebilirliği konusunda Avrupa İnovasyon Derneği'nin (AEI) operasyonel gruplarına yardım çağrısı kapsamında "Granada ilindeki arı arılarında bal arısı hastalıklarının hızlı izlenmesi için yeni moleküler araçlar" (GOPG-GR-23-0002) hibesi ile desteklenmiştir. Ayrıca, İspanyol Bilgi Üretimi ve R+D+I Sisteminin Bilimsel ve Teknolojik Güçlendirilmesi Programı'nın, MCIN/AEI/10.13039/501100011033 tarafından finanse edilen PID2021-126938OB-I00 hibesinin desteğini ve "ERDF/EU" tarafından sağlanan desteği de kabul ediyoruz. Asociación de Pequeños Apicultores de Granada (APAG) ve Cooperativas Agroalimentarias de Granada (FAECA) arıcıları tarafından sağlanan yardım ve kaynakları çok takdir ettik. Çalışma, D. Pedro García Olmedo'nun doktora tezinin bir parçasıdır. Temel ve Sistem Biyolojisi Doktora Programı (Granada Üniversitesi, UGR).
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0,2 mL DNAse ve RNAse içermeyen Eppendorf tüpleri | Axygen | MTC-02-C | |
| 1,5 mL DNAse ve RNAse içermeyen Eppendorf tüpleri | Axygen | MTC-150-C | |
| 10 μ L düşük tutma filtreli uçlar | Laboratuvar Klinikleri | 5-063-P5-0 | |
| 100 μ L düşük tutma filtreli uçlar | Laboratuvar Klinikleri | 5-120-P5-0 | |
| 1000 μ L düşük tutma filtreli uçlar | Laboratuvar Klinikleri | 5-203-P4-0 | |
| BH-200 Serisi Stuart Kuru Blok Isıtıcı | Cole-Parmer | EW-36610-00 | |
| DEPC ile arıtılmış su | Ambicon | AM9906 Serisi | |
| EDTA | Sigma-Aldrich | 798681 | |
| EnGen Lba Cas12a (cpf1) | New England Biyolaboratuvarları | M0653T | |
| Sigma-Aldrich | Sigma-Aldrich | 64-17-5 | |
| Hcl | Sigma-Aldrich | 7647-01-0 | |
| Mikrotüp havaneli | Balıkçı markası | 12141364 | |
| Milenia GenLine HybriDetect | Milenyum | MGHD 1 | |
| NaOH | Sigma-Aldrich | 221465 | |
| RPA kiti TwistAmp Sıvı Temel | Büküm Amp | TALQBAS01 | |
| Neşter bıçakları | Swann-Morton Hakkında | 201 | |
| Tek Kanallı Pipet PIPETMAN P1000L Mikropipet Metal çıkarma | Gilson'ın | F144059M | |
| Tek Kanallı Pipet PIPETMAN P100L Mikropipet Metal çıkarma | Gilson'ın | F144057M | |
| Tek Kanallı Pipet PIPETMAN P10L Mikropipet Metal çıkarma | Gilson'ın | F144055M | |
| Sodyum hipoklorit | |||
| Gerçek Zamanlı PCR Algılama Sistemine Dokunun | BioRad | CFX96 Serisi | |
| Tris-HCl | Sigma-Aldrich | T1503 Serisi | |
| TwistAmp Sıvı Temel | Burmak | TALQBAS01 |
Kaynaklar
- Goulson, D., Nicholls, E., Botías, C., Rotheray, E. L. Bee declines driven by combined stress from parasites, pesticides, and lack of flowers. Science. 347 (6229), 1255957(2015).
- Murphy, J. T., Breeze, T. D., Willcox, B., Kavanagh, S., Stout, J. C. Globalisation and pollinators: pollinator declines are an economic threat to global food systems. People and Nature. 4 (3), 773-785 (2022).
- Zattara, E. E., Aizen, M. A. Worldwide occurrence records suggest a global decline in bee species richness. One Earth. 4 (1), 114-123 (2021).
- Carreira de Paula, J., et al. Promastigote EPS secretion and haptomonad biofilm formation as evolutionary adaptations of trypanosomatid parasites for colonizing honeybee hosts. NPJ Biofilms Microbiomes. 10 (1), 27(2024).
- Requier, F., et al. First large-scale study reveals important losses of managed honeybee and stingless bee colonies inLatin America. Sci Rep. 14 (1), 10079(2024).
- Babin, A., Schurr, F., Rivière, M. P., Chauzat, M. P., Dubois, E. Specific detection and quantification of three microsporidia infecting bees, Nosema apis, Nosema ceranae, and Nosema bombi, using probe-based real-time PCR. Eur J Protistol. 86, 125935(2022).
- Cameron, T. C., Wiles, D., Beddoe, T. Current status of loop-mediated isothermal amplification technologies for the detection of honeybee pathogens. Front Vet Sci. 8, 659683(2021).
- Schurr, F., et al. Validation of quantitative real-time RT-PCR assays for the detection of six honeybee viruses. J Virol Methods. 270, 70-78 (2019).
- Xu, G., et al. Triplex real-time PCR for detection of Crithidia mellificae and Lotmaria passim in honeybees. Parasitol Res. 117 (2), 623-628 (2018).
- D'Alvise, P., Seeburger, V., Gihring, K., Kieboom, M., Hasselmann, M. Seasonal dynamics and co-occurrence patterns of honeybee pathogens revealed by high-throughput RT-qPCR analysis. Ecol Evol. 9 (18), 10241-10252 (2019).
- Shao, G., Zhu, X., Hua, R., Chen, Y., Yang, G. Development of a copro-RPA-CRISPR/Cas12a assay to detect Echinococcus granulosus nucleic acids isolated from canine feces using NaOH-based DNA extraction method. PLoS Negl Trop Dis. 18 (12), e0012753(2024).
- Xiao, Y., Fei, D., Li, M., Ma, Y., Ma, M. Establishment and application of CRISPR-Cas12a-based recombinase polymerase amplification and a lateral flow dipstick and fluorescence for the detection and distinction of deformed wing virus types A and B. Viruses. 15 (10), 2041(2023).
- Li, Z., et al. Cas-OPRAD: a one-pot RPA/PCR CRISPR/Cas12 assay for on-site Phytophthora root rot detection. Front Microbiol. 15, 1390422(2024).
- Osmundson, T. W., Eyre, C. A., Hayden, K. M., Dhillon, J., Garbelotto, M. M. Back to basics: an evaluation of NaOH and alternative rapid DNA extraction protocols for DNA barcoding, genotyping, and disease diagnostics from fungal and oomycete samples. Mol Ecol Resour. 13 (1), 66-74 (2013).
- Truett, G. E., et al. Preparation of PCR-quality mouse genomic DNA with hot sodium hydroxide and Tris (HotSHOT). BioTechniques. 29 (1), 52-54 (2000).
- Klintschar, M., Neuhuber, F. Evaluation of an alkaline lysis method for the extraction of DNA from whole blood and forensic stains for STR analysis. J Forensic Sci. 45 (3), 669-673 (2000).
- Galanis, A., et al. Bee foraging preferences, microbiota and pathogens revealed by direct shotgun metagenomics of honey. Mol Ecol Resour. 22 (7), 2506-2523 (2022).
- Xiang, Z., et al. A simple alkali lysis method for Plasmodium falciparum DNA extraction from filter paper blood samples. Mol Biochem Parasitol. , 254(2023).
- Shwani, A., Zuo, B., Alrubaye, A., Zhao, J., Rhoads, D. D. A simple, inexpensive alkaline method for bacterial DNA extraction from environmental samples for PCR surveillance and microbiome analyses. Appl Sci. 14 (1), 141(2024).
- Fowler, E. V., et al. Development of a cost-effective, morphology-preserving method for DNA isolation from bulk invertebrate trap catches: tephritid fruit flies as an exemplar. PLoS One. 18 (2), e0281759(2023).
- Yuan, J., et al. CRISPR-Cas12a-mediated hue-recognition lateral flow assay for point-of-need detection of Salmonella. Anal Chem. 96 (1), 220-228 (2024).
- Xiao, Y., et al. Ultra-sensitive and rapid detection of pathogenic Yersinia enterocolitica based on the CRISPR/Cas12a nucleic acid identification platform. Foods. 11 (14), 2160(2022).
- Dong, J., et al. Comparative evaluation of PCR-based, LAMP and RPA-CRISPR/Cas12a assays for the rapid detection of Diaporthe aspalathi. Int J Mol Sci. 25 (11), 5773(2024).
- Zhang, X., et al. CRISPR/Cas12a combined with recombinase polymerase amplification for rapid and sensitive detection of Vibrio vulnificus in one tube. Acta Biochim Biophys Sin. 55 (2), 322-326 (2023).
- Li, P. R., et al. An RPA-assisted CRISPR/Cas12a assay combining fluorescence and lateral flow strips for the rapid detection of enterotoxigenic Bacillus cereus. J Agric Food Chem. 72 (24), 14000-14010 (2024).
- Sun, Y., et al. One-tube SARS-CoV-2 detection platform based on RT-RPA and CRISPR/Cas12a. J Transl Med. 19 (1), 74(2021).
- Aman, R., et al. iSCAN-V2: a one-pot RT-RPA-CRISPR/Cas12b assay for point-of-care SARS-CoV-2 detection. Front Bioeng Biotechnol. 9, 800104(2022).
- Peng, R., Lu, Z., Liu, M., Hu, F. RT-RPA-assisted CRISPR/Cas12a for rapid and multiplex detection of respiratory infectious viruses based on centrifugal microfluidics. Sens Actuators B Chem. 399, 134838(2024).
- Liu, Y., et al. One-tube RPA-CRISPR Cas12a/Cas13a rapid detection of methicillin-resistant Staphylococcus aureus. Anal Chim Acta. 1278, 341757(2023).
- Nguyen, L. T., Smith, B. M., Jain, P. K. Enhancement of trans-cleavage activity of Cas12a with engineered crRNA enables amplified nucleic acid detection. Biochemistry. 59 (17), 1474-1481 (2020).
- Hao, J., et al. Application of a lyophilized CRISPR/Cas12a and RPA assay for rapid detection of Actinobacillus pleuropneumoniae. Microchem J. 206, 111443(2024).
- Lin, C., et al. A universal all-in-one RPA-Cas12a strategy with de novo autodesigner and its application in on-site ultrasensitive detection of DNA and RNA viruses. Biosens Bioelectron. 239, 115609(2023).
Yeniden basım ve izinler
Düzeltme
Formal Correction: Erratum: On-site DNA Detection of Trypanosomatid Parasites and Nosema ceranae Through Alkaline Lysis Coupled to RPA/CRISPR/Cas12a System
Posted by JoVE Editors on 8/14/2025. Citeable Link.
This corrects the article 10.3791/68874
