Burada, yüksek metabolik proksimal tübüler epitel hücrelerinde hipoksi/reoksijenasyon hasarını modellemek için in vitro bir protokolü tanımlıyoruz. Bu model, proksimal tübul hasar belirteçlerinin ekspresyonu ve mitokondriyal solunum fonksiyonunun değerlendirilmesi yoluyla ölçülebilen metabolik stres kaynaklı hasarı indüklemek için tasarlanmıştır.
Yöntem makalesi
Proksimal tübüler epitel hücrelerinde hipoksi/reoksijenlenme yaralanmasının modellenmesi
Bu makalede
Özet
Özet
Böbrek nakli, nakil edilen tüm katı organların yaklaşık %60-65'ini oluşturur. Çoğu donör böbrek, ölen bireylerden elde edilir ve uzun süreli soğuk koruma gerektirir; bu da kötü nakil sonuçlarına katkıda bulunan bilinen bir kaynaktır. Mevcut koruma stratejilerine rağmen, iskemi-reperfüzyon hasarı (IRI), geçici kan akışı kesintisinin kaçınılmaz bir sonucu olmaya devam etmekte olup, oksijen ve besin eksikliğine yol açmaktadır. Nefron içinde, S3 segmentine ait proksimal tübüler epitel hücreleri (PTEC'ler), yüksek metabolik talebi ve mitokondriyal oksidatif fosforilasyona bağımlılığı nedeniyle IRI'ye özellikle hassastır. Moleküler düzeyde, IRI mitokondriyal metabolizmayı bozar ve ATP üretimini azaltır; bu da proksimal tübüler epitel hücrelerinin (PTEC) enerji gereksinimlerini azaltır ve apoptoz ile nekrozu teşvik eder. Bu mekanizmaları araştırmak ve potansiyel terapötik stratejileri değerlendirmek için, PTEC'lerin metabolik savunmasızlığını doğru şekilde özetleyen sağlam ve tekrarlanabilir in vitro böbrek IRI modelleri gereklidir. Burada, fare ölümsüzleştirilmiş PTEC'lerde (IM-PTEC) hipoksi/reoksijenasyon (H/R) yaralanmasının indüksiyonu ve değerlendirilmesi için bir protokolü tanımlıyoruz. Protokol, bu hücrelerin korunması için gereken ortam bileşimi ve kültür koşulları hakkında ayrıntılı bilgiler içerir; ardından nakil edilen böbreklerdeki iskemi ve reperfüzyon olaylarını yakından taklit eden kontrollü hipoksi ve reoksijenasyon fazlarıyla H/R hasarının indüklenmesi yapılır. Bu model, H/R hasarına maruz kalan böbrek epitelyal hücreleri üzerindeki farklı müdahalelerin etkilerini değerlendirmek için değerli bir platform sağlar. Bu tedavilerin etkisi, PT hasarıyla ilişkili belirteçlerin ekspresyonunun analizi ve mitokondriyal solunum fonksiyonunun değerlendirilmesi yoluyla değerlendirilebilir. Bu okumalar birlikte, bileşik etkinliği ve hücresel iyileşme süreçleri hakkında mekanik içgörüler sunarak böbrek IRI için hedefli tedavilerin geliştirilmesini destekler.
Giriş
Küresel Bağış ve Nakil Gözlemevi'ne göre, böbrek nakli dünya genelinde tüm katı organ nakillerinin yaklaşık %60-65'ini oluşturuyor ve 2023'te yapılan işlem sayısı, karaciğer nakillerinden neredeyse üç kat daha fazladır; karaciğer nakli en yaygın ikinci türdür. O yıl yapılan böbrek nakillerinin %61'inde organ ölen donörlerdenkaynaklanmıştır 1; bu, canlı donörlerden yapılan nakllere kıyasla daha uzun bir koruma süresi gerektirir ve bekleme süresi önemli ölçüde dahakısadır 2. Bu koruma döneminde, böbrekler genellikle hücresel metabolizmayı yavaşlatmak için statik soğuk depolama kullanılarak korunur; bu da oksijen ve enerji ihtiyacını azaltır ve böylece iskemikhasarı sınırlar. Ancak, statik soğuk depolama yalnızca kısmi koruma sağlar; çünkü hücresel metabolizmayı veya oksijen teslimatını tam olarak sürdüremez; bu da koruma sırasında ilerleyici metabolik işlev bozukluğuna yolaçar 4,5. Alternatif olarak, ex vivo normotermik koruma, organı neredeyse fizyolojik sıcaklıkta tutmak için uygulanabilir bir strateji olarak ortaya çıkmıştır; böylece hücresel metabolizma ve oksijenasyonu destekler ve dolayısıyla iskemi-reperfüzyon hasarını (IRI)6 azaltır.
Ancak, böbrek nakli sırasında IRI nedeniyle akut böbrek hasarı (AKI) kaçınılmaz bir sonuçtur. IRI, organ içindeki kan akışının kesilmesinden kaynaklanır ve oksijen ile besin arzı ile talebi arasında dengesizlikoluşur 7. Bu süreç, nakil edilen böbreğin işlevi üzerinde doğrudan etki gösterir ve akut reddedilme riskini artırır ve uzun vadeli greft fonksiyonunuazaltır 8,9.
PTEC'ler—özellikle böbrek korteksinde bol bulunur—IRI'ye karşı özellikle savunmasızdır. Bu hücreler, tübüler epitelin yaklaşık %60-70'ini oluşturur ve glomerüler filtratın çoğunun, su, iyonlar, glikoz ve amino asitler dahil olmak üzere yeniden emirilenindensorumludur 10. Yüksek metabolik aktiviteleri, ATP'ye bağlı taşıma ihtiyaçlarını karşılamak için geniş bir mitokondriyal ağ tarafındandesteklenir 11. Sonuç olarak, oksijen eksikliği ve mitokondriyal işlev bozukluğu gibi metabolik bozulmalara karşı son derece hassastırlar ve bunlar IRI12'nin merkezi özellikleridir.
IRI sırasında, oksijen yoksunluğu mitokondriyal oksidatif fosforilasyonu bozarak ATP tükenmesine ve yeniden emilim fonksiyonununbozulmasına yol açar 13,14. Bu, yağ asidi oksidasyonundan (FAO) anaerobik glikolize ve pentoz fosfat yolunun aktivasyonuna metabolik geçişi başlatır; bu yol, geçici koruyucu olsa da, bu hücrelerin enerjik ve redoks ihtiyaçlarını tam karşılamak için yetersizdir15. FAO'nun baskılanması onarım aşamasında devam ederse, lipid birikimi16 ve lipotoksisite17 başlar; bu da hücrelere daha fazla zarar verir ve rejeneratif kapasitelerinidüşürür 18. Bu uyumsuz metabolik durum, nihayetinde tübüler atrofi, interstisyel fibroz ve kronik böbrek hastalığına ilerlemeye yolaçabilir 19.
Bu metabolik bozulma, kusurlu FAO tarafından yönlendirildiğinde, böbrek tübülü'nün yüksek enerji gereksinimlerini karşılamayeteneğini engeller 17,19. Ortaya çıkan ATP azalması ve lipid birikimi, mitokondriyal işlev bozukluğunu ve reaktif oksijen türlerinin oluşumunu teşvik eder; bu da pro-inflamatuar sinyal ve lökosit sızmasını aktiveeder 20,21,22. Kalıcı iltihap ve oksidatif hasar, mitokondriyal bütünlüğü istikrarsızlaştırır, enerji eksikliğini artırır ve sonunda apoptotik ve nekrotik hücre ölümünütetikler 23,24. Bu akut yaralanma aşamasında, Böbrek Yaralanması Molekülü 1 (KIM-1) ve Nötrofil Jelatinaz Ilişkili Lipocalin (NGAL) gibi spesifik biyobelirteçler yükseltilir ve bu da proksimal tübüler hasarın ve erken AKI25'in hassas göstergeleri olarak hizmet eder.
Akut yaralanmadan sonra, uyumsuz onarım mekanizmaları aşırı ekstrasellüler matriks birikmesini teşvik eder; bu, böbrek fibrozunun ayırt ediciözelliğidir 26. Ekstraselüler matriks bileşenleri arasında, özellikle tip I kollajen (Col1a1 geni tarafından kodlanan) kolajen interstisiel boşlukta birikir ve tübüler atrofiye ile fonksiyonel parenkim27 kaybına katkıda bulunur. Bu fibrotik yeniden yapılanma büyük ölçüde tübüler epitel hücrelerinde tübüler yaşlanma ve kısmi epitelyalden mezenkimal geçişe (pEMT) yol açarak böbrek fonksiyonel düşüşe yolaçmaktadır 28,29,30. Böbrek pEMT ve fibrozis başlangıcı, AKI'den kronik böbrek hastalığına (CKD) ilerlemeye yardımcı olur; bu da geri dönüşü olmayan böbrek fonksiyonu kaybı ve greft sağ kalma süresinin azalmasıylasonuçlanır 31,32.
Bu protokolde, kontrollü H/R koşullarına maruz kalan fare SV40-immortalize edilmiş proksimal tübüler epitel hücreleri (IM-PTEC) kullanılarak in vitro H/R yaralanma modelini tanımlıyoruz. Böbrek IRI'nin çoğu preklinik çalışması geleneksel olarak hayvan modellerine dayanmıştır; bu modeller böbreğin karmaşık damar ve bağışıklık yanıtlarını yeniden üretir ancak daha yüksek maliyetler, etik endişeler ve önemli ölçüde daha yüksek biyolojik değişkenlikgerektirir 33,34. Bu sınırlamalar, ayrıntılı mekanik ve yüksek verimli çalışmalar için geçerli olan tamamlayıcı hücre tabanlı sistemlerin gelişimini yavaşlatmıştır. Bu deneysel düzen, nakil edilen böbreklerde gözlemlenen IRI'nin temel özelliklerini taklit ederek oksijen yoksunluğu ve restorasyonu olarak tekrarlanabilir simülasyon yapılmasına olanak tanır. Model, kontrollü bir ortamda tübüler hasarın, biyomarker ekspresyonunun ve fibrotik yanıtların altında yatan hücresel ve moleküler mekanizmaları incelemek için değerli bir araç olarak hizmet vermektedir. Ayrıca, iskemik hasarı önlemeye veya hafifletmeye yönelik potansiyel terapötik stratejilerin taraması ve değerlendirilmesi ve nakil sonrası sonuçları iyileştirmeye yönelik uygun bir platform sağlar.
Protokol
Bu protokolde kullanılan hücreler, bu çalışma bağlamında izole edilmemiştir. Daha önce izole edilip diğer araştırmacılar tarafındansunulmuştu35. Bu nedenle, yeni hayvan deneyleri yapılmadı ve mevcut çalışma için etik onay gerekmedi.
1. IM-PTEC kültürü
- Tablo 1'de tarif edildiği gibi L3 ortamı hazırlayın.
- Bir şişe IM-PTEC erit. Yaklaşık 1 x 10⁶ hücre, nemlendirilmiş bir kuluçka makinesinde, 33 °C'de, standart koşullarda (%5 CO2, atmosferO 2) %80 birleşime kadar kültürlenerek (genellikle 3 gün sonra ulaşılır).
NOT: IM-PTEC'ler Immorto farelerinden izole edilmiştir. IM-PTEC izolasyonu hakkında ayrıntılı bir protokol içinlütfen 35'e bakınız. - Alt kültür hücreleri haftada 2 kez, yaklaşık 1:10 bölünme oranında. Geçiş için, yapışkan tek tabakayı %0,05 tripsin-EDTA ile 33 °C'de 2-3 dakika boyunca ayırın, tam büyüme ortamıyla nötralize edin ve taze kültür şişelerinde yeniden tohumlanın.
| Parça | Miktar/Son Medya Konsantrasyonu |
| DMEM/F12 | 500 mL |
| Fetal baldır serumu (FCS) | 10% |
| Penisilin | 10.000 U/mL |
| Streptomisin | 10.000 μg/mL |
| L-glutamin | 0.02 μM |
| Insülin | 5 μg/mL |
| Transferrin | 5 μg/mL |
| Sodyum Selenit | 5 μg/mL |
| Triiodotironin | 40 pg/mL |
| Hidrokortizon | 36 ng/mL |
| Epidermal Büyüme Faktörü | 20 ng/mL |
| Interferon γ (IFN-γ) | 10 ng/mL |
Tablo 1: L3 orta bileşimi.
2. IM-PTEC'lerin kısıtlayıcı kültürü
- Alt kültür 1.3'te tanımlandığı gibi ve bir T-25 şişesinden tüm hücre süspansiyonunu, interferon-γ (IFN-γ) olmadan yaklaşık 10 mL L3 ortamı içeren bir T-75 şişesine aktarılır. Kültür 37 °C'de standart koşullarda %80 birleşime kadar (genellikle 3 gün sonra ulaşılır) yapılır.
- Alt kültürü 1.3. adımda tarif edildiği gibi ve tüm hücre süspansiyonunu bir T-75 şişesinden yaklaşık 20 mL L3 ortamı içeren iki T-175 şişesine IFN-γ olmadan aktarır. Kültür 37 °C'de standart koşullarda %80 birleşime kadar (genellikle 3 gün sonra ulaşılır) yapılır.
- Deneyler için %0,05 tripsin-EDTA kullanarak birleşen kültürlerden hücreler ayrılır, tam ortamda yeniden süzülür ve istenen yoğunlukta (yaklaşık 1 x 10⁵) tohumlanarak yapılır. Moleküler belirteç ifade analizi için 6-delik plakalar veya mitokondriyal solunum çalışmaları için uygun 96-delik hücre kültürü mikroplakaları kullanın.
NOT: Diğer deneyler için uygun bir kültür formatı kullanın.- Mitokondriyal solunum çalışmaları için hücreleri 96 kuyruklu bir hücre kültürü mikroplakasında plakalarken, köşelerdeki dört kuyuyu boş bırakarak arka plan düzeltmesi olarak kullanın. Mikroplakayı oda sıcaklığında 1 saat bekleyip hücrelerin yerleşmesini sağlamak için kuluçka makinesine yerleştirin.
3. Hipoksi/reoksijenasyon prosedürü (Şekil 1)
- IM-PTEC'leri kültür ortamı çıkararak ve IFN-γ içermeyen taze L3 ortamı ekleyerek yenileyin (96 kuyu plakalar için 0.1 mL/well veya 6 kuyu plakalar için 2 mL/well). Hücreleri %1 O2, %5 CO2 ile 37 °C'de 48 saat boyunca bir hipoksi kuluçka makinesine yerleştirin.
- Hücreleri hipoksi kuluçka makinesinden çıkarın ve IFN-γ olmadan L3 ortamında yenileyin. Hücreleri standart O2 koşullarında ve %5CO2 sıcaklığında 37 °C'de 24 saat boyunca hücre kültürüne yerleştirin.
NOT: Hipoksik koşullar, kontrol edilen gaz kaynağına bağlı modüler bir hipoksi odası veya hipoksi odası kullanılarak sağlanabilir.
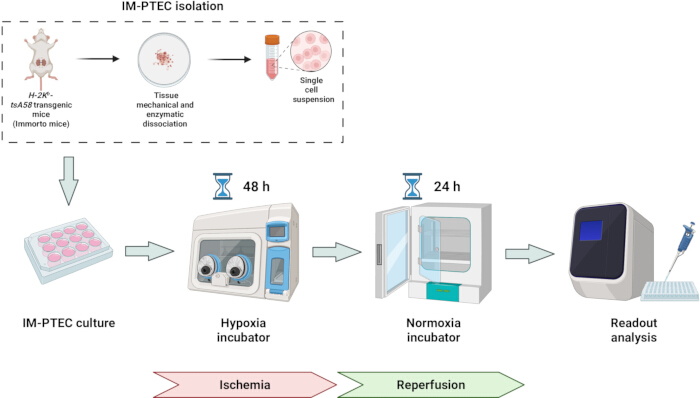
Şekil 1: Ölümsüzleştirilmiş proksimal tübüler epitel hücrelerinde (IM-PTEC'lerde) in vitro H/R modelinin şematik temsili. H-2Kb-tsA58 transgenik (Immorto) farelerden türetilen IM-PTEC'ler, normoksik koşullarda kültürlendi, hipoksiye maruz kaldı (%1 O2, 48 saat) ve ardından okunma analizi için (standart O2 koşulları, 24 saat) yeniden oksijenlendi. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
4. Moleküler belirteçlerin ifadesinin analizi
- RNA izolasyonu
- 6 kuyululu plakanın her kuyusuna 800 μL RNA izolasyon reaktifi ekleyin. Oda sıcaklığında 5 dakika kuluçka yapın. Örnekleri RNAse-free 1.5 mL mikrosantrifüj tüplerine aktarın.
- 200 μL klorofom ekleyin ve pipetle 15 saniye iyice karıştırın. Oda sıcaklığında 2-3 dakika kuluçka yapın.
- 12.000 x g sıcaklıkta 4 °C'de 12 dakika boyunca santrifüj yapın. Sulu üst fazı RNAssız 1.5 mL mikrosantrifüj tüpüne aktarın.
- 500 μL izopropanol ekleyin. Oda sıcaklığında 10 dakika kuluçka yapın. Santrifüj 12.000 x g sıcaklıkta 4 °C'de 10 dakika boyunca kullanın.
- Üst yüzeyi atın ve pelleti 1 mL %70 etanol ile yıkayın. 5.000 x g sıcaklıkta 4 °C'de 5 dakika boyunca santrifüj yapın. Üst yüzeyi at.
- Pelleti hava ile kurut. Pelleti 12 μL RNAssız suda çözür.
- Örneği 56 °C'de 15 dakika ısıtın. Mikro hacimli UV-Vis spektrofotometresinde RNA konsantrasyonunu ölçmek.
NOT: RNA bozulmasını önlemek için inkubasyon aşamaları arasında örnekleri her zaman buzda tutun.
- Ters transkripsiyon
- Buz üzerinde, RNAse-içermeyen 0,2 mL mikrosantrifüj tüpüne aşağıdaki reaksiyon bileşenleri eklenin: 10 μL Master Mix (2x), 2 μL Enzim Karışımı, 1-5 μg RNA ve 20 μL'ye kadar nükleazsız H2O.
- Nazik karıştırın ve 25 °C'de 10 dakika kuluçka yapın, ardından 50-55 °C'de 10 dakika kuluçka yapın.
- Reaksiyonu 85 °C'de 5 dakika ısıtarak ve buz üzerinde soğutarak etkisiz hale getirin. CDNA'yı 1:5 veya 1:10 oranında seyreltin.
- Gerçek Zamanlı Nicel PCR (RT-qPCR)
- Astar setlerini son konsantrasyon 10 μM'de karıştırarak hazırlayın (Tablo 2).
- Her genin ölçülmesi için, her kuyu başına aşağıdaki reaktifleri içeren bir Real-Time (RT) qPCR karışımı hazırlanın: 5 μL RT-qPCR Master Mix; 0,4 μL 10 μM ön primer, 0,4 μL 10 μM ters primer ve 2,2 μL nükleazsız H2Oiçerir.
- 384 kuyuluğa sahip PCR plakasının her kuyusuna 8 μL RT-qPCR karışımı ekleyin. Her kuyuyuga 2 μL cDNA örneği ekleyin, böylece kuyunun kenarında bir damla bırakın.
- Tüm örnekleri ekledikten sonra, tüm damlalar kuyulara düşene kadar plakaya hafifçe dokunun. Plakayı membranıyla sıkıca mühürleyin. 384 kuyuklu PCR plakasını döndürün.
- RT qPCR Sisteminde aşağıdaki programla ölçün: 30 saniye 98 °C, 10 saniye için 98 °C 40 döngü, ardından 30 saniye 60 °C ve 95 °C'de erime eğrisi.
| Gen | Giriş dizileri |
| Kim-1 | F: 5' - TGGTTGCCTTCCGTGTCTCTCT |
| R: 5' - TCAGCTCGGGAATGCACAA | |
| Ngal | F: 5' - ATGTCACCTCCATCCTGGTCAG |
| R: 5' - GCCACTTGCACATTGTAGCTCTG | |
| Acta2 | F: 5' - GCCATCTTTCATTGGGATGGA |
| R: 5' - CCCCTGACAGGACGTTGTTA | |
| Col1a1 | F: 5' - CCTCAGGGTATTGCTGGACAAC |
| R: 5' - CAGAAGGACCTTGTTTGCCAGG |
Tablo 2: RT-qPCR için kullanılan primer dizileri.
5. Mitokondriyal solunum fonksiyonu değerlendirmesi
- Testten bir gün önce
- Oksijen tüketim oranı (OCR)/ekstrahücre asitlenme hızı (ECAR) analizörünü açın ve deneyden en az 5 saat önce ısınmasına izin verin.
- Bir sensör kartuşunu 37 °C'de CO2 olmayan bir kuluçka atöründe gece boyunca nemlendirin.
- Değerlendirme günü
- Bir 96 delikli hücre kültürü mikroplakası için analiz ortamı hazırlayın ve şunları içerir: 33,4 mL DMEM ortamı pH 7,4; 0,875 mL glikoz 1 M (nihai konsantrasyon 25 mM); 0,35 mL piruvat 100 mM (nihai konsantrasyon 1 mM); ve 0,35 mL 200 mM Glutamine (nihai konsantrasyon 2 mM).
- Tablo 3'e göre inhibitör çözeltiler hazırlayın.
- Monte edilmiş Sensör Kartuşu kuluçka makinesinden çıkarın. Her inhibitörün 25 μL'sini çok kanallı pipet ve yükleme kılavuzu kullanarak ilgili portuna yükleyin.
- Hücre kültürü mikroplakasından hücre kültürü büyüme ortamını çıkarın. Her kuyuya çok kanallı pipet kullanarak 175 μL önceden ısıtılmış (37 °C) test ortamı ekleyin.
- Hücre kültürü mikroplakasını testten önce 45-60 dakika boyunca 37 °C'likCO2 olmayan bir kuluçka makinesine yerleştirin.
- Kalibrasyon için yüklü sensör kartuşuyla birlikte kalibrasyon plakasını OCR/ECAR analizörüne yerleştirin.
- Hücre kültürü mikroplakasını ölçüm için enstrümata yerleştirin.
- Çalışmadan sonra, veri normalizasyonu için toplam proteinin nicelendirilmesi amacıyla hücre kültürü mikroplakası saklanır.
| [Kartuş] (μM) | [Analiz medyum] (μM) | Port A | Port B | C Limanı | |
| Oligomisin | 12 | 1.5 | 8.4 μL | ||
| FCCP | 9 | 1 | 6.3 μL | ||
| Antimisin A | 25 | 2.5 | 17.5 μL | ||
| Rotenone | 12.5 | 1.25 | 8.75 μL | ||
| Analiz ortamı | 3.5 mL | 3.5 mL |
Tablo 3: Mitokondriyal solunum değerlendirmesi için inhibitör çözümler.
Sonuçlar
İlk olarak IM-PTEC'lerde iskemik yaralanmayı yeniden üretmek için optimal hipoksi/reoksijenasyon (H/R) koşullarını belirlemek amacıyla zaman süreci doğrulaması gerçekleştirildi. Hem in vivo hem de in vitro böbrek iskemi-reperfüzyon yaralanmasının ayırt edici özelliği olan kaspaz-3 aktivasyonu, model sadakatinin36,37 göstergesi olarak kullanılmıştır. 48 saat hipoksi ve 24 saat reoksijenlenmenin kaspaz-3 aktivitesinde en büyük artışı sağladığını bulduk. MTT testi ile değerlendirilen hücre canlılığı, bu koşullar altında normoksik kontrollerle karşılaştırılabilir kaldı; bu da apoptotik sinyal başlatılırken, hücrelerin sonraki farmakolojik testler için canlı kaldığını gösterdi (Ek Şekil 1). Bu doğrulanmış protokol, kontrollü hipoksi/IM-PTEC'lerin reoksijenlenmesi yoluyla H/R hasarını indüklemek için kullanıldı.
İskemik hakaretten sonra, böbrek hasarının birkaç belirtecinin ekspresyonu belirlemek için RT-qPCR yapıldı (Şekil 2). RT-qPCR, IRI bağlamında, akut böbrek hasarının bilinen belirteçleri olan Kim-1 38,39 ve Ngal40,41 ekspresyonun anlamlı şekilde arttığını gösterdi. Ayrıca, böbrek pEMT/fibrozis belirteçleri olan Acta2 42,43 ve Col1a144,45,46 ekspresyonu da arttı. Böbrek pEMT/fibroz belirteci olmasının yanı sıra, Col1a1 ekspresyonu CKDşiddeti 47 ile ilişkilendirilebilir. /p>
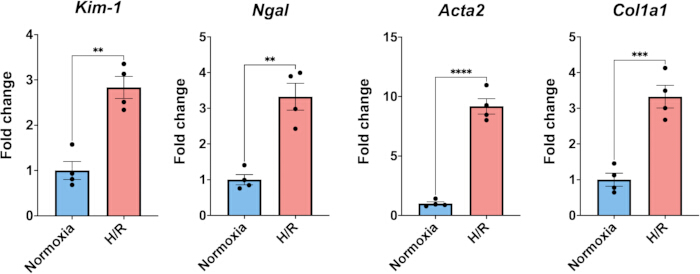
Şekil 2: Böbrek hasarı belirteçlerinin normoksi veya hipoksi/reoksijenasyon (H/R) altında moleküler ekspresyonesi. H/R'den sonra, böbrek hasarı moleküler belirteçleri Kim-1, Ngal, Acta2 ve Col1a1'in ifadesi IM-PTEC'lerde anlamlı şekilde artar. Veriler, her koşul başına dört biyolojik kopyadan ortalama ± standart hata (SEM) olarak sunulur. İstatistiksel anlamlılık, çiftsiz iki kuyruklu Öğrenci t-testi kullanılarak değerlendirildi. Anlamlılık seviyeleri şu şekilde belirtilmiştir: p < 0.05 (*), p < 0.01 (**), p < 0.001 (***) ve p < 0.0001 (****). Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
H/R sonrası mitokondriyal solunum kapasitesini belirlemek için mitokondriyal solunum çalışmaları da yapılmıştır (Şekil 3). Oksijen Tüketimi Oranı (OCR) ölçümüyle, iskemik zorluktan sonra tüm mitokondriyal solunum parametrelerinin (bazal solunum, ATP üretimi, proton sızıntısı, maksimum solunum ve yedek kapasite) azaldığını ve bunun mitokondriyal metabolizmanın engellendiğine işaret ettiğini belirledik.
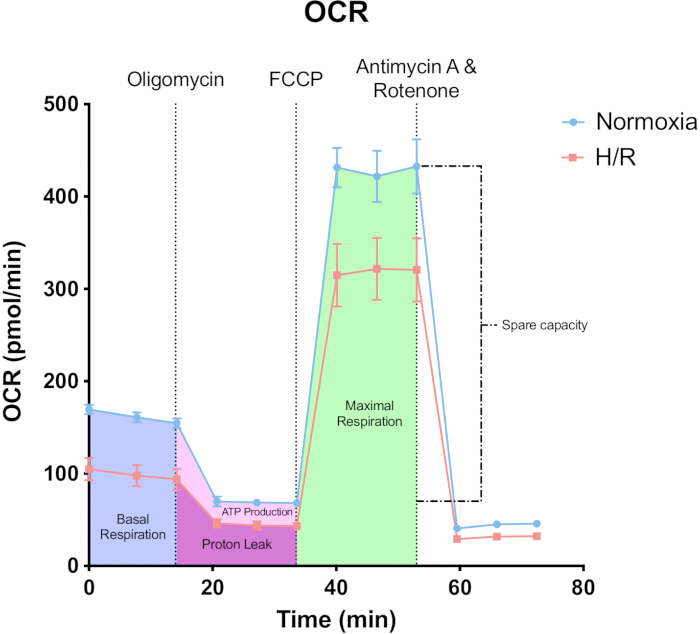
Şekil 3: IM-PTEC'lerde normoksik veya hipoksik koşullarda OCR (oksijen tüketim oranı). Hipoksi/reoksijenasyon (H/R) sonrasında, IM-PTEC'lerde mitokondriyal solunum fonksiyonu azalmıştır. Mitokondriyal solunum, elektron taşıma zinciri inhibitörleri sıralı olarak eklenerek değerlendirildi: oligomisin, FCCP (karbonil siyanür-p-trifluorometoksifenilhidrazon), antimisin A ve rotenon. Veriler, her koşul başına dört biyolojik kopyadan ortalama ± standart hata (SEM) olarak sunulur. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Bu sonuçlar, H/R protokolünün IV-PTEC'lerde iskemik böbrek hasarıyla uyumlu moleküler ve metabolik değişiklikleri etkili şekilde indüklediğinidoğrulamaktadır 48,49. Bu protokol, in vitro böbrek iskemi-reperfüzyon benzeri durumların yeniden üretilmesi için faydalı bir çerçeve sağlar.
Ek Şekil 1. Noroksi ve hipoksi/reoksijenasyon (H/R) koşullarında hücre canlılığı ve kaspaz-3 aktivitesi. (A) Hücre yaşamı. Hücre canlılığı, normoksi veya hipoksi/reoksijenlenme (H/R) maruziyetinden sonra MTT testi ile değerlendirildi. Sonuçlar, normoksik kontrollere göre normalleştirilmiş göreceli canlılık (%) olarak ifade edilir. (B) Kesilmiş kaspaz-3. Farklı normoksi (N), hipoksi (H) ve reperfüzyon (R) sürelerine maruz kalan hücrelerde kesilmiş kaspaz-3 aktivitesi (nmol/min/mg protein) nicelendirildi. Veriler ortalama SEM ± olarak sunulur ve her nokta bireysel biyolojik bir kopyayı temsil eder. Bu şekliği indirmek için lütfen buraya tıklayın.
Tartışma
Böbrek IRI kaynaklı AKI ile ilgili çoğu preklinik veri, yerleşik in vitro modellerin eksikliği nedeniyle in vivo modeller 50,51,52,53 üzerinden üretilmektedir. Bu durum, iyi karakterize edilmiş fare immortalize edilmiş proksimal tübüler epitel hücre hatlarının sınırlı bulunabilirliğine ek olarak, in vitro araştırmaları kısıtlar ve bu protokolün geliştirilmesini değerli bir varlık haline getirir. Bu yöntem, kontrollü koşullarda böbrek H/R hasar mekanizmalarını incelemek için daha erişilebilir ve tekrarlanabilir bir platform sağlarken, hayvan kullanımına olan ihtiyacı da azaltır.
Ayrıca, bu protokol ağırlıklı olarak standart laboratuvar ekipmanlarını kullanır ve özel ve pahalı cihazlara ihtiyaç olmadan uygulanmasını kolaylaştırır. Tek istisna, genellikle hipoksik tümör mikro ortamlarını yeniden oluşturmak için kanser araştırma laboratuvarlarında bulunan bir hipoksi kuluçka makinesigereksinimidir 54,55,56. Bu erişilebilirlik, daha geniş bir benimsemeyi destekler ve farklı laboratuvarlar arasında tekrarlanabilirliği teşvik eder.
Bu protokolde kritik bir husus, doğru IM-PTEC kültürüdür. Hücreler 33 °C'de kültürlenmelidir ve SV40 aktivitesinin aşağı regulasyonunu önlemek için IFN-γ ile takviye edilmelidir. Deneysel prosedürlerden önce, IM-PTEC'ler deneylere başlamadan önce 7 gün boyunca kısıtlayıcı koşullara geçirilir. Kısıtlayıcı kültür, sıcaklığın 37 °C'ye yükseltilmesiyle ve ortamdan interferon-gamma'nın (IFN-γ) 1 hafta boyunca çıkarılmasıyla sağlanır; bu da SV40 büyük T antijen ekspresyonunu azaltır - Simian Virüsü 40 tarafından kodlanan vehücreleri ölümsüzleştirmek için kullanılan viral protein 35,57 - hücrelerin ölümsüzleştirilmiş statülerini kaybetmesine ve daha farklılaşmış, fizyolojik olarak ilgili bir fenotipinoluşmasına neden olur 58. Özellikle, IM-PTEC'ler kültürde birkaç gün sonra belirgin sitoplazmik vakuoller geliştirebilir; Vakuolasyon gerçekleşirse, bu değişimi önlemek veya tersine çevirmek için kültür ortamından hidroksikortizon çıkarılmalıdır.
Ölümsüzleştirilmiş PTEC'lerin kullanımı stabilite ve bakım kolaylığı avantajı sunarken, araştırmacılar fizyolojik önemi artırmak için birincil proksimal tübüler epitel hücrelerini de değerlendirebilirler. Ancak, fare birincil PTEC'leri donor-donördeğişkenliği daha yüksek (59,60) ve sınırlı proliferatifkapasiteye sahiptir (61,62), bu da onları yüksek verimli veya uzun vadeli deneyler için daha az uygun hale getirir. Kullanımları, doğrulama çalışmaları veya belirli hasta kaynaklı yanıtlar incelenirken daha uygun olabilir
Bu protokol, H/R hasarının altında yatan moleküler mekanizmaları araştırmak, potansiyel terapötik yaklaşımları belirlemek ve değerlendirmek ve kontrollü bir ortamda iltihaplanma, oksidatif stres ve hücre ölümü yolları gibi hücresel yanıtları incelemek için değerli bir platformsağlar 63,64.
Buna rağmen, bu modelin önemli bir sınırlaması, böbrek naklinde gözlemlenen hipotermi ve soğuk depolama sırasında besin eksikliği gibi bazı iskemi özelliklerini yenidenüretmemesidir 9. Bu durumlar hücresel metabolizmayı ve yaralanma kalıplarını belirgin şekilde etkiler ve bunların olmaması, bulguların klinik ortama aktarılmasınıkısıtlayabilir 65,66.
Sonuç olarak, IM-PTEC'lerdeki bu in vitro H/R modeli, kontrollü koşullar altında böbrek iskemi-reperfüzyon yaralanmasını incelemek için tekrarlanabilir, erişilebilir ve etik açıdan elverişli bir yaklaşım sunmaktadır. In vivo iskeminin karmaşıklığını tam olarak özetlemese de, hücresel mekanizmaları aydınlatmak, terapötik adayları taramak ve böbrek araştırmalarında hayvan deneylerine bağımlılığı azaltmak için değerli bir tamamlayıcı araçtır.
Açıklamalar
Yazarlar, bu çalışmayla ilgili çıkar çatışmaları olmadığını açıklıyor
Teşekkürler
Mariano Marin-Blazquez, Murcia Katolik Üniversitesi'nden (UCAM) "Programa de Doctorado en Ciencias de la Salud"a aittir. Ruben Rabadan-Ros ve Ruben Zapata-Perez grubundaki çalışmalar, Ministerio de Ciencia, Innovación y Universidades - Proyectos de Generación de Conocimiento 2023 (PID2023-147560OA-I00) tarafından sağlanan bir hibe ile desteklenmektedir. Ruben Rabadán-Ros Fundación Séneca - Agencia de Ciencia y Tecnología de la Región de Murcia (22524/JLI/24, Ayudas a Proyectos para la Generación de Nuevo Liderazgo Científico Jóvenes Líderes en Investigación 2024) tarafından desteklenmektedir. AT, Zonmw (no. 457002002) tarafından yürütülen Sağlıklı Yaşlanma konusundaki NWO-FAPESP ortak hibe ve Nierstichting'den Junior Talent Grant ile finansal olarak desteklenmektedir.
Yazarlar, Universidad de Murcia (UM) ve Universidad Católica de Murcia (UCAM)'a, video görüntülerinin kaydedildiği tesislerine erişim sağladıkları için minnettarlıkla teşekkür etmektedir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 384-kuyuklu qPCR plakası | Uygulamalı Biyosistemler | 4309849 | |
| Santrifüj | Ortoalresa | Biocen22R | |
| Kloroform | VWR | 0757-500ML | |
| DMEM/F12 | Gibco | 21331020 | |
| Epidermal Büyüme Faktörü | Sigma-Aldrich | E9644 | |
| Etanol | PanReac AppliChem | 141086.1214 | |
| FCS | Biowest | S181B-500 | |
| Isıtma bloğu | Eppendorf | TermoMikser C | |
| Hidrokortizon | Sigma-Aldrich | H0135 | |
| Hipoksi Kuluçka Makinesi | Memmert | ICO 50med | |
| IFN-γ | ProspecBIo | CYT-358 | |
| Kuluçka makinesi | Memmert | ICO 105 | |
| İzopropanol | VWR | 0918-1L | |
| ITSe | Gibco | 41400045 | |
| L-glutamin | Gibco | 25030081 | |
| Çok kanallı pipet | Eppendorf | 3125000052 | |
| Non-CO2 kuluçka makinesi | |||
| PCR primerleri | Eurofins Genomics | ||
| Penisilin - Streptomisin | Gibco | 15140-122 | |
| qPCR Master Mix | NZYTech | MB22303 | |
| Gerçek Zamanlı qPCR Sistemi | Uygulamalı Biyosistemler | QuantStudio 5 | |
| Ters transkripsiyon Master Mix | NZYTech | MB12502 | Enzim karışımı içerir |
| RNAssız su | HyClone | SH3053802 | |
| Seahorse XF Hücre Mito Stres Test Kiti | Çevik | 103015-100 | Oligomisin, FCCP, Antimisin A ve Rotenon içerir |
| Seahorse XF DMEM ortamı | Çevik | 103575-100 | |
| Seahorse XF Glikozu | Çevik | 03577-100 | |
| Deniz Atı XF Glutamin | Çevik | 103579-100 | |
| Seahorse XF Pyruvate | Çevik | 103578-100 | |
| Seahorse XFe96 Analizörü | Çevik | S7800BR | |
| Seahorse XFe96 FluxPak | Çevik | 103792-100 | XFe96 Hücre Kültürü Mikroplakası ve XFe96 Sensör Kartuşu içerir |
| Termal döngücü | BIO-RAD | T100 Termal Döngücü | |
| Triiodotironin | Sigma-Aldrich | T5516 | |
| Trizol | Invitrogen | 15596026 | |
| UV-Vis spektrofotometre | DeNovix | DS-11 |
Kaynaklar
- Use of the data/quoting data. GODT. , Global Observatory on Donation and Transplantation. https://www.transplant-observatory.org/uses-of-dataquoting-data (2016).
- van de Laar, S. C., Lafranca, J. A., Minnee, R. C., Papalois, V., Dor, F. J. M. F. The Impact of Cold Ischaemia Time on Outcomes of Living Donor Kidney Transplantation: A Systematic Review and Meta-Analysis. J Clin Med. 11 (6), 1620(2022).
- Tingle, S. J., et al. Machine perfusion preservation versus static cold storage for deceased donor kidney transplantation. Cochrane Database Syst Rev. 3 (3), CD011671(2019).
- Jing, L., Yao, L., Zhao, M., Peng, L., Liu, M. Organ preservation: from the past to the future. Acta Pharmacol Sin. 39 (5), 845-857 (2018).
- Smith, T. B., Nicholson, M. L., Hosgood, S. A. Advances in Hypothermic and Normothermic Perfusion in Kidney Transplantation. Transplantology. 2 (4), 460-477 (2021).
- Montagud-Marrahi, E., et al. Ex vivo normothermic preservation of a kidney graft from uncontrolled donation after circulatory death over 73 hours. Front Bioeng Biotechnol. 11, 1330043(2023).
- Malek, M., Nematbakhsh, M. Renal ischemia/reperfusion injury; from pathophysiology to treatment. J Renal Inj Prev. 4 (2), 20-27 (2015).
- Ditonno, P., et al. Effects of ischemia-reperfusion injury in kidney transplantation: risk factors and early and long-term outcomes in a single center. Transplant Proc. 45 (7), 2641-2644 (2013).
- Salvadori, M., Rosso, G., Bertoni, E. Update on ischemia-reperfusion injury in kidney transplantation: Pathogenesis and treatment. World J Transplant. 5 (2), 52-67 (2015).
- Park, J., et al. Single-cell transcriptomics of the mouse kidney reveals potential cellular targets of kidney disease. Science. 360 (6390), 758-763 (2018).
- Curthoys, N. P., Moe, O. W. Proximal Tubule Function and Response to Acidosis. Clin J Am Soc Nephrol. 9 (9), 1627-1638 (2014).
- Bhargava, P., Schnellmann, R. G. Mitochondrial energetics in the kidney. Nat Rev Nephrol. 13 (10), 629-646 (2017).
- Erpicum, P., Rowart, P., Defraigne, J. O., Krzesinski, J. M., Jouret, F. What we need to know about lipid-associated injury in case of renal ischemia-reperfusion. Am J Physiol Renal Physiol. 315 (6), F1714-F1719 (2018).
- Vasko, R. Peroxisomes and Kidney Injury. Antioxid Redox Signal. 25 (4), 217-231 (2016).
- Lan, R., et al. Mitochondrial Pathology and Glycolytic Shift during Proximal Tubule Atrophy after Ischemic AKI. J Am Soc Nephrol. 27 (11), 3356-3367 (2016).
- Lipke, K., Kubis-Kubiak, A., Piwowar, A. Molecular Mechanism of Lipotoxicity as an Interesting Aspect in the Development of Pathological States-Current View of Knowledge. Cells. 11 (5), 844(2022).
- Jang, H. S., Noh, M. R., Kim, J., Padanilam, B. J. Defective Mitochondrial Fatty Acid Oxidation and Lipotoxicity in Kidney Diseases. Front. Med. 7, 65(2020).
- Rinaldi, A., et al. Impaired fatty acid metabolism perpetuates lipotoxicity along the transition to chronic kidney injury. JCI Insight. 7 (18), e161783(2022).
- Kang, H. M., et al. Defective fatty acid oxidation in renal tubular epithelial cells has a key role in kidney fibrosis development. Nat Med. 21 (1), 37-46 (2015).
- Chen, Y., et al. Mitochondrial metabolism and targeted treatment strategies in ischemic-induced acute kidney injury. Cell Death Discov. 10 (1), 69(2024).
- Bhatia, D., Capili, A., Choi, M. E. Mitochondrial dysfunction in kidney injury, inflammation, and disease: potential therapeutic approaches. Kidney Res Clin Pract. 39 (3), 244-258 (2020).
- Zhao, L., et al. Energy metabolic reprogramming regulates programmed cell death of renal tubular epithelial cells and might serve as a new therapeutic target for acute kidney injury. Front Cell Dev Biol. 11, 1276217(2023).
- Fontecha-Barriuso, M., et al. Tubular Mitochondrial Dysfunction, Oxidative Stress, and Progression of Chronic Kidney Disease. Antioxidants. 11 (7), 1356(2022).
- Wang, H., Zhang, S., Guo, J. Lipotoxic Proximal Tubular Injury: A Primary Event in Diabetic Kidney Disease. Front Med (Lausanne). 8, 751529(2021).
- Bhosale, S. J., Kulkarni, A. P. Biomarkers in Acute Kidney Injury. Indian J Crit Care Med. 24 (Suppl 3), S90-S93 (2020).
- van der Rijt, S., Leemans, J. C., Florquin, S., Houtkooper, R. H., Tammaro, A. Immunometabolic rewiring of tubular epithelial cells in kidney disease. Nat Rev Nephrol. 18 (9), 588-603 (2022).
- Liu, Y. Cellular and molecular mechanisms of renal fibrosis. Nat Rev Nephrol. 7 (12), 684-696 (2011).
- Lovisa, S., et al. Epithelial-to-mesenchymal transition induces cell cycle arrest and parenchymal damage in renal fibrosis. Nat Med. 21 (9), 998-1009 (2015).
- Luo, C., et al. Wnt9a Promotes Renal Fibrosis by Accelerating Cellular Senescence in Tubular Epithelial Cells. J Am Soc Nephrol. 29 (4), 1238-1256 (2018).
- Mylonas, K. J., et al. Cellular senescence inhibits renal regeneration after injury in mice, with senolytic treatment promoting repair. Sci Transl Med. 13 (594), eabb0203(2021).
- Mimura, I., Nangaku, M. The suffocating kidney: tubulointerstitial hypoxia in end-stage renal disease. Nat Rev Nephrol. 6 (11), 667-678 (2010).
- Fine, L. G., Norman, J. T. Chronic hypoxia as a mechanism of progression of chronic kidney diseases: from hypothesis to novel therapeutics. Kidney International. 74 (7), 867-872 (2008).
- Lerink, L. J. S., et al. Preclinical models versus clinical renal ischemia reperfusion injury: A systematic review based on metabolic signatures. American Journal of Transplantation. 22 (2), 344-370 (2022).
- Harwood, R., et al. Murine models of renal ischemia reperfusion injury: An opportunity for refinement using noninvasive monitoring methods. Physiol Rep. 10 (5), e15211(2022).
- Leemans, J. C., et al. Renal-associated TLR2 mediates ischemia/reperfusion injury in the kidney. J Clin Invest. 115 (10), 2894-2903 (2005).
- Havasi, A., Borkan, S. C. Apoptosis and acute kidney injury. Kidney Int. 80 (1), 29-40 (2011).
- Wang, X., Wang, W., Wang, J. Z., Yang, C., Liang, C. -Z. Effect of apigenin on apoptosis induced by renal ischemia/reperfusion injury in vivo and in vitro. Ren Fail. 40 (1), 498-505 (2018).
- Bonventre, J. V. Kidney injury molecule-1: a translational journey. Trans Am Clin Climatol Assoc. 125, discussion 299 293-299 (2014).
- Ichimura, T., et al. Kidney injury molecule-1 (KIM-1), a putative epithelial cell adhesion molecule containing a novel immunoglobulin domain, is up-regulated in renal cells after injury. J Biol Chem. 273 (7), 4135-4142 (1998).
- Clerico, A., Galli, C., Fortunato, A., Ronco, C. Neutrophil gelatinase-associated lipocalin (NGAL) as biomarker of acute kidney injury: a review of the laboratory characteristics and clinical evidences. Clin Chem Lab Med. 50 (9), 1505-1517 (2012).
- Xu, C., Lin, S., Mao, L., Li, Z. Neutrophil gelatinase-associated lipocalin as predictor of acute kidney injury requiring renal replacement therapy: A systematic review and meta-analysis. Front Med (Lausanne). 9, 859318(2022).
- Huang, R., Fu, P., Ma, L. Kidney fibrosis: from mechanisms to therapeutic medicines. Sig Transduct Target Ther. 8 (1), 1-20 (2023).
- Schreibing, F., Anslinger, T. M., Kramann, R. Fibrosis in Pathology of Heart and Kidney: From Deep RNA-Sequencing to Novel Molecular Targets. Circ Res. 132 (8), 1013-1033 (2023).
- Wang, Q., et al. CircCSPP1 Functions as a ceRNA to Promote Colorectal Carcinoma Cell EMT and Liver Metastasis by Upregulating COL1A1. Front Oncol. 10, 850(2020).
- Zhu, X., Luo, X., Jiang, S., Wang, H. Bone Morphogenetic Protein 1 Targeting COL1A1 and COL1A2 to Regulate the Epithelial-Mesenchymal Transition Process of Colon Cancer SW620 Cells. J Nanosci Nanotechnol. 20 (3), 1366-1374 (2020).
- Salimian, N., Peymani, M., Ghaedi, K., Hashemi, M., Rahimi, E. Collagen 1A1 (COL1A1) and Collagen11A1(COL11A1) as diagnostic biomarkers in Breast, colorectal and gastric cancers. Gene. 892, 147867(2024).
- Mavrogeorgis, E., et al. Collagen-Derived Peptides in CKD: A Link to Fibrosis. Toxins. 14 (1), 10(2022).
- Kurian, G. A., Pemaih, B. Standardization of in vitro Cell-based Model for Renal Ischemia and Reperfusion Injury. Indian J Pharm Sci. 76 (4), 348-353 (2014).
- Strazdauskas, A., et al. In Vitro Hypoxia/Reoxygenation Induces Mitochondrial Cardiolipin Remodeling in Human Kidney Cells. Int J Mol Sci. 25 (11), 6223(2024).
- Wang, H. J., Varner, A., AbouShwareb, T., Atala, A., Yoo, J. J. Ischemia/reperfusion-induced renal failure in rats as a model for evaluating cell therapies. Ren Fail. 34 (10), 1324-1332 (2012).
- Greite, R., et al. Renal ischemia-reperfusion injury causes hypertension and renal perfusion impairment in the CD1 mice which promotes progressive renal fibrosis. Am J Physiol Renal Physiol. 314 (5), F881-F892 (2018).
- Skrypnyk, N. I., Harris, R. C., de Caestecker, M. P. Ischemia-reperfusion Model of Acute Kidney Injury and Post Injury Fibrosis in Mice. J Vis Exp. (78), e50495(2013).
- Le Clef, N., Verhulst, A., D'Haese, P. C., Vervaet, B. A. Unilateral Renal Ischemia-Reperfusion as a Robust Model for Acute to Chronic Kidney Injury in Mice. PLoS One. 11 (3), e0152153(2016).
- Ma, R., He, X., Wang, H., Jia, W., Zeng, X. Hypoxic microenvironment promotes proliferation and invasion of non-small cell lung cancer A549 Cells through Wnt/β-catenin signaling pathway. Biomed Res. 29 (2), 268-273 (2018).
- Metsälä, O., et al. Transportable system enabling multiple irradiation studies under simultaneous hypoxia in vitro. Radiat Oncol. 13, 220(2018).
- Nushtaeva, A. A., et al. Establishment of primary human breast cancer cell lines using "pulsed hypoxia" method and development of metastatic tumor model in immunodeficient mice. Cancer Cell Int. 19 (1), 46(2019).
- Stokman, G., et al. Stem Cell Factor Expression after Renal Ischemia Promotes Tubular Epithelial Survival. PLoS One. 5 (12), e14386(2010).
- Stokman, G., et al. Epac-Rap signaling reduces cellular stress and ischemia-induced kidney failure. J Am Soc Nephrol. 22 (5), 859-872 (2011).
- Bejoy, J., Qian, E. S., Woodard, L. E. Tissue Culture Models of AKI: From Tubule Cells to Human Kidney Organoids. J Am Soc Nephrol. 33 (3), 487-501 (2022).
- Li, Y., et al. An in vitro method for the prediction of renal proximal tubular toxicity in humans. Toxicol Res. 2 (5), 352-365 (2013).
- Wilmer, M. J., et al. Novel conditionally immortalized human proximal tubule cell line expressing functional influx and efflux transporters. Cell Tissue Res. 339 (2), 449-457 (2010).
- Terryn, S., et al. A primary culture of mouse proximal tubular cells, established on collagen-coated membranes. Am J Physiol Renal Physiol. 293 (2), F476-F485 (2007).
- Zapata-Pérez, R., et al. Reduced nicotinamide mononucleotide is a new and potent NAD+ precursor in mammalian cells and mice. FASEB J. 35 (4), e21456(2021).
- Tammaro, A., et al. HDAC1/2 inhibitor therapy improves multiple organ systems in aged mice. iScience. 27 (1), 108681(2024).
- Verstraeten, L., Den abt, R., Ghesquière, B., Jochmans, I. Current Insights into the Metabolome during Hypothermic Kidney Perfusion-A Scoping Review. J Clin Med. 12 (11), 3613(2023).
- Turkmen, K., et al. Apoptosis and Autophagy in Cold Preservation Ischemia. Transplantation. 91 (11), 1192(2011).
Yeniden basım ve izinler
