Bu protokol, genç RAC1/CED-10 mutant Caenorhabditis elegans'ta niceliksel bir dışkılama testini detaylandırır ve prodromal Parkinson hastalığı evrelerini incelemek için basit bir model sunar. Diğer hayvan modellerinin sınırlamalarını aşar ve erken Parkinson patolojisini hedefleyen terapötik stratejilerin test edilmesini kolaylaştırır.
Yöntem makalesi
Caenorhabditis elegans RAC1/CED-10 mutantlarında Gastrointestinal Motilite'nin Erken Parkinson Hastalığını Araştırmak İçin Bir Araç Olarak Değerlendirilmesi
Bu makalede
Özet
Özet
Parkinson hastalığı (PD), en yaygın nörodejeneratif bozukluklardan biridir ve önemli dopaminergik nöron kaybından sonra ortaya çıkan motor semptomlara dayanarak teşhis edilir. Kabızlık gibi motor olmayan semptomlar en yaygın olanlardır ve genellikle daha erken ortaya çıkar, bu da hastalığın başlangıcını gösterir. Birçok hayvan modeli nörodejeneratif hastalıkları incelemek için kullanılır, ancak çoğu sonraki evrelere odaklanır. Nörodejenerasyonun tam başlangıcını belirlemek zor olduğundan, tek bir model hastalık ilerlemesini tam olarak temsil etmez. Memeli modelleri uzun yaşam döngüleri nedeniyle özellikle zaman alıcı ve pahalıdır. Buna karşılık, kısa yaşam ve üreme döngüsü (~3 hafta 3 gün) olan şeffaf 1 mm nematod Caenorhabditis elegans (C. elegans), hızlı üretim değişimi sayesinde daha hızlı ve maliyet etkin deneyler yapılmasını sağlar. C. elegans'taki dışkılama motor programı, Rho/rac GTPazların katıldığı karmaşık genetik ağ tarafından düzenlenen ritmik döngülerden oluşur ve RAC1 ( C. elegans'ta CED-10) bunlardan biridir. RAC1/CED-10 mutantlarının GABAerjik morfolojisi ve fonksiyonunun bozulduğunu ve bunun da dışkılama döngülerinin bozulmasına yol açtığını gösterdik. Burada, RAC1/CED-10 C. elegans'ın erken evrelerinde kabızlığın ölçülmesi için deneysel protokolü sunuyoruz. Bu protokol, nörodejenerasyon öncesi erken PD semptomlarını araştırmak için öngörücü bir araç olarak hizmet vermenin yanı sıra, farmakolojik müdahalenin etkinliğini değerlendirmek için erken bir son nokta olarak da kullanılabilir. Bu değişiklikler hastalığa özgü olmadığından, bu modelin diğer hastalıklarda erken ortaya çıkan değişiklikleri araştırmak için değerli bir araç sağladığına inanıyoruz.
Giriş
Parkinson hastalığı (PD), en yaygın ikinci nörodejeneratif bozukluk ve nörolojik engelliliğin başlıcanedenlerinden biridir 1,2. Patolojik özellikleri arasında Lewy cisimleri ve Lewy nöriteleri bulunur; bunlar esas olarak α-synuklein içerir; ayrıca substantia nigra ve diğer beyin bölgelerinde nöronkaybı vardır 3.
Klinik olarak, PD bir hareket bozukluğu olarak sınıflandırılır, ancak aynı zamanda geniş bir spektrumda motor olmayan semptomlarla da karakterize edilir. Motor bozukluklar, substantia nigra'da dopaminergik nöron dejenerasyonu ve striatal dopamin azalmasından kaynaklanır. Ancak, kabızlık, anksiyete ve REM uyku davranış bozukluğu gibi motor olmayan semptomlar genellikle yıllar önce, prodromal aşamada, nörodejenerasyonun ekstranigral yapıları (örneğin, beyin sapı, koku sistemi ve otonom yollar) etkilediği dönemde ortaya çıkar.
Doktor Bozuklukları araştırmalarında en büyük zorluklardan biri, klinik başlangıcın gecikmesidir: motor semptomlar genellikle dopaminergik nöronların %60-80'i kaybedildikten sonraortaya çıkar 3, bu noktada terapötik müdahale daha az etkili olur. Erken motor olmayan semptomlar (örneğin, otonomik disfonksiyon) prodromalPD 6 için biyobelirteç olarak hizmet edebilir, ancak özgül olmamaları kesin teşhisi zorlaştırır. Bu sınırlamalar göz önüne alındığında, hayvan modelleri erken PD evrelerini incelemek, semptom karakterizasyonunu standartlaştırmak ve şu anda eksik olan nörodejenerasyonu yavaşlatabilecek veya önleyebilecek nöroprotektif tedavilerin geliştirilmesinde hayati öneme sahiptir.
RAC1/CED-10 C. elegans mutantları anahtarı erken ve geç aşama PD özelliklerini yenidenözetlemektedir: 6. Daha önce RAC1 aktivitesinin dopaminergik nöronun hayatta kalma ve işlevi için kritik olduğunu, α-sinüklein kaynaklı toksisiteye karşı korumasağladığını göstermiştik 7. Ayrıca, RAC1/CED-10 mutantları, erken dönem PD'ye benzeyen fenotipik değişiklikler sergiler; bunlar arasında lipid metabolizması düzensizliği ve GABAerjik disfonksiyon bulunur; sonuncusu bozulmuş dışkılama döngülerindeyansır. Bu bulgular, RAC1/CED-10 mutantlarını, dejeneratif öncesi PD patofizyolojisini incelemek için uygulanabilir bir model olarak ortaya koymaktadır.
Burada, RAC1/CED-10 mutantları için optimize edilmiş bir dışkılama testini anlatıyoruz; bu test, bağırsak dismotilitesini nicel olarak yakalayabiliyor ve PD'nin prodromal fazında gastrointestinal özelliklerin sistematik olarak incelenmesini sağlıyor.
Protokol
NOT: Vahşi tip: N2 Bristol kullanıldı. Erken PD RAC1/CED-10 modeli: BR3579 sızı genotipi ced-10(n3246) olarak adlandırılmış ve burada RAC1/CED-10 olarak adlandırılmıştır. Bu hediye, Dr. Ralf Baumeister (Albert-Ludwig Üniversitesi, Freiburg/Breisgau, Almanya) tarafından cömertçe bir hediyeydi. Bu ced-10(n3246) varyantı güçlü bir aleldir. Ced-10(n3246) mutasyonu, CED-10'un glisin 60'ının arginine (G60R) dönüşüne yol açan G-A-ya geçiştir; bu da sıfır olmayan fonksiyon 8,9'a yol açıyor. Bu allelin şiddeti, diğer ced-10 allelleri 10'a kıyasla daha güçlüdür. Çalışma boyunca hermafroditler kullanıldı.
1. Solucan bakımı
- 25 mL nematod büyüme ortamı (NGM) 150 mm Petri kablarına dökün ve agarın katılaşmasına izin verin. Her plakaya 500 μL Escherichia coli OP50 kültürü ekin ve süspansiyon agar yüzeyine eşit şekilde yayılır. Plakaları gece boyunca 30 °C'de kuluçka altına alın, böylece bakteri büyümesi sağlanır. Plakaları kullanımdan 24 saat önce hazırlayın.
2. Larva gelişiminin 4 . aşamasında senkronize edilmiş solucan elde etmek (L4)
- L4 larva gelişim aşamasında senkronize edilmiş solucanlarla bağırsak hareketliliğinin ölçümlerini gerçekleştirin. Bu geliştirme aşamasında solucan elde etmek için, aşağıda açıklanan ( 11'den uyarlanmış) ağartma protokolünü takip edin ve RAC1/CED-10fenotipi 11 ile ilgili küçük değişiklikler yapılabilir.
- Yumurta bırakmak ve solucanların 3 gün boyunca büyümesini sağlamak için Escherichia coli OP50 ile NGM plakalarına 10 gravid yetişkin ekleyin. Alternatif olarak, karışık popülasyon içeren bir NGM plakasından bir agar parçasını yeni bir NGM plakasına aktarabilirsiniz. Bu durumda, yaşam döngüsü kontrolü 10 gravid yetişkin kullanıldığında olduğu kadar hassas değildir. 80 saat sonra, vahşi tiplerde karışık bir C elegans hermafrodit popülasyonu ve gravid yetişkinler gözlemlenmiştir. RAC1/CED-10 mutantları 6 saat gecikmeli gelişimgösterdi 6, yani 86 saatte kazarlı yetişkinler ortaya çıktı.
NOT: Gravid yetişkinler, içinde yumurta olduğu için tanımlanır. - 15 mL'lik tüplerde (ilgili genotiple etiketlenmiş) gravit yetişkinleri elde etmek için 10 mL M9 içeren plakalar yıkayın.
- Solucanları oda sıcaklığında 2000 x g (~1500 rpm) sıcaklıkta 2 dakika boyunca santrifüjle geçirin, süpernatantı atın ve 10 mL taze M9 tamponu ekleyin.
NOT: Oda sıcaklığında çalışmasına rağmen, 10 °C'de santrifüj yaparak daha iyi sonuçlar gözlemledik. - 2.4. adımı 3 kez veya tampon bakterilerden (şeffaf süpernatant) arınana kadar gerçekleştirin. Bakteri varlığı, üst yüzeyin hafifçe sarımsı ve bulanık görünmesinden anlaşılabilir.
- Toplam hacmi 3,5 mL'ye M9 tamponu ekleyin.
NOT: Deneyimimize göre, steril damıtılmış su - hatta musluk suyu - bu aşamada kirlenmeden kullanılabilir, çünkü sonraki ağartma işlemi mikropları yok eder. Ancak, laboratuvarlar arasında tekrarlanabilirliği sağlamak için M9 tamponu veya steril su öneriyoruz. - 0,5 mL 5M NaOH ile 1 mL çamaşır suyu karıştırarak ağartıcı çözeltiyi hazırlayın. Bu çözeltiyi kullanımdan hemen önce taze yapın. Solucanların bulunduğu santrifüj tüpüne 1,5 mL karışım ekleyin.
- Ağartma sırasında tüpleri şiddetle karıştırın ve yetişkin dokusunun yok oluşunu disseksiyon mikroskobu altında izleyin. Sadece yetişkin izleri göründüğünde reaksiyonu durdurun.
NOT: Ağartma işlemi yetişkin solucanları ve larvaları öldürürken, embriyolar yumurta kabuğu onları ağartıcıdan koruduğu için canlı kalır. Bu adım hayatta kalanları elde etmek için kritiktir. Fazla zaman tüm solucanları öldürebilir. Vortex kullanmak şiddetle tavsiye edilir, ancak sonra her 3 dakikada bir kütikülün yok oluşunu kontrol edin. RAC1/CED-10 mutantları çamaşır suyuna karşı daha hassastır. Yetişkin dokunun parçalanmasını her 2 dakikada bir izleyin ve asla 8 dakikayı aşmayın. - Reaksiyonu durdurmak için tüpü doldurmak için M9 tamponu ekleyerek (~15 mL). Hızlı bir şekilde santrifüj yapın (çünkü tedavi hâlâ aktif olabilir) 2.000 x g ile 1 dakika boyunca ve süpernatantı atın.
- Tüpü M9 tamponu ile doldurup yukarıda tarif edildiği gibi santrifüj yaparak peleti 3 kez yıkayın. Son yıkamadan sonra, üst maddeyi dikkatlice çıkarın ve yaklaşık 0,1 mL kalana kadar.
- Bu yumurtaları yeni bir 15 mL tüpe ekleyin ve M9'u 5 mL'ye ekleyin. Oda sıcaklığında hafif bir dönüşle kuluçka yapın. Doğru havalandırma sağlanmalıdır.
NOT: 2.9. adım hariç tüm adımlarda M9 yerine musluk suyu kullanarak iyi senkronizasyon sonuçları elde ettik. - 24 saat sonra rotasyonu durdurun ve solucanları 2.000 x g hassasiyetinde 1 dakika boyunca 10 °C'de santrifüj yaparak pellet yapın.
- OP50 ile tohumlanmış ve ilgili genotiple etiketlenmiş 150 cm NGM plakalarda ilgili genotiplere sahip peletli solucanların 30-50 μL plakası. Birkaç RAC1/CED-10 solucanı, RAC1/CED-10 genotipinin (kişisel gözlem) temel bir özelliği olarak ölü göründü. Buna göre, bu mutantların iki kat hacmini kapatın ve ertesi gün onları izleyin.
NOT: Kaplamalı solucanların hacmi, ağartma protokolünün verimine bağlıdır. Bir tabak başına 250 solucan sayısını aşmayın, çünkü yiyecek daha hızlı tükenir ve solucanlar açlığa girebilir. Gelişim süresindeki fark, vahşi tip solucanların ilk dışkılama döngülerini kaydetmek için akıllıca kullanılabilir ve ardından RAC1/CED-10 solucanlarının (bkz. sonraki bölüm). - 34 saatlik kuluçkadan sonra larva gelişiminin L4 aşamasında vahşi tip solucanları kontrol edin. RAC1/CED-10 solucanları için aynı geliştirme aşaması 40 saat6 içinde gerçekleştirilecektir. L4 solucanlarını L3 ve genç yetişkinlerden ayırt etmek için boyutlarını (~650 μm) ölçerek ve ay benzeri vulva yapılarınıkontrol edin 12.
3. Bağırsak hareketliliğinin kaydedilmesi
- Plakaları 3 mL M9 ile yıkayarak L4 solucanlarını iki adet 1.5 mL santrifüj tüpüne geri alın.
- 2.000 x g sıcaklıkta 1 dakika boyunca santrifüj yapın (Şekil 1A), üst yüzeyi çıkarın ve 1 mL taze M9 tampon ekleyin. Adımı 3 kez tekrarlayın.
- Bu yıkanmış solucanları OP50 olmadan bir NGM plakasında örtün (Şekil 1B). Bu yıkama ve son kaplama adımlarıyla fazla bakterileri ortadan kaldırın.
- Solucanları bireysel olarak 5 μL OP50 bakterisi tohumlanmış 12 kuyulu plakalara aktarın (Şekil 1C). Solucanların 20 °C'de 1 saat boyunca uyum sağlamasına izin verin.
NOT: Bu plakalar tohumlanıp kurutulmaya bırakıldıktan sonra solucanlar eklendi. Bu plakaları önceden hazırlamamak daha iyidir çünkü bakterilerin aşırı büyümesi dışkılama döngüsünün görselleştirilmesini zorlaştırabilir. - Solucanlarla dolu 12 kuyruklu plakaları mikroskop altına yerleştirin, bir solucanı lokalize edin ve kayıt yapmaya başlayın. 15 dakika (15 döngü; Şekil 1D). 12 bit çözünürlük ve 60 kare (fps) kare hızı sunan bir kamerayla görüntüleme için 5x objektif kullanın. Windows'taki Snipping Tool ile video edinimi gerçekleştirin. İlk dışkı döngüsünü tespit ettiğinizde kayda başlayın.
NOT: Mikroskop bir bilgisayara bağlıysa, Snipping Tool ile ekranı doğrudan kaydedebilirsiniz. Dışkı döngüsü izlemek için bilgisayar kronometresi bulundurmanızı şiddetle tavsiye ederiz. Dışkılama döngüsünün sonunda her seferinde Tur düğmesine tıklayın.
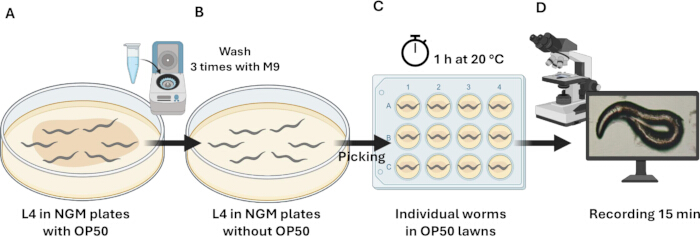
Şekil 1: Bağırsak hareketliliğini ölçmek için deneysel protokolün şematik diyagramı. (A) Gelişimin L4 aşamasında senkronize solucanlar. Bu solucanlar toplanıp M9 ile 3 kez yıkandı. (B) Yıkanmış solucanlar, OP50 olmadan NGM plakalarıyla kaplanıyordu. (C) Solucanlar, OP50 ile birlikte 12 kuyuyla bir plakada tek tek toplandı ve 20 °C'de 1 saat boyunca sürünmelerine izin verildi. Bu süre zarfında solucanlar yeni ortama uyum sağlar ve transfer stresinden rahatlar. (D) Bireysel solucanlar bağırsak hareketliliği analiz etmek için 15 dakika boyunca kaydedildi. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
4. Dışkılama döngüsünün analizi
NOT: C. elegans'ta dışkı motor programı, karmaşık bir genetik ağ tarafından yönetilen ritmik döngülerden oluşur. Bu program, her biri diseksiyon mikroskopu altında kolayca tespit edilebilen üç ardışık, farklı kas kasılmasından oluşur. İlk adım, arka vücut duvarı kaslarının (pBoc) kaslarının kasılmasını içerir; ardından ön vücut duvarı kaslarının kasılması (aBoc) ve son olarak bağırsak içeriğinin dışlanması (Exp)13 (Şekil 2) ortaya çıkar.
- 20 °C'de deneyler yapın. Tüm videolar kaydedildikten sonra veri analizine başlayın.
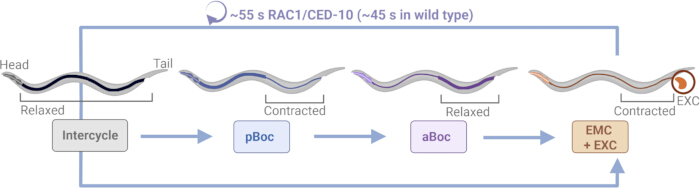
Şekil 2: C. elegans RAC1/CED-10 mutantlarında dışkılama döngüsü. RAC1/CED-10 mutant nematodlarında C. elegans dışkılama döngüsünün diyagramatik temsili. pBoc, arka vücut duvarı kaslarının kasılmasını ifade eder; aBoc, ön vücut duvarı kaslarının kasılmasını ifade ederken, EMC + EXC bağırsak içeriğinin dışarı çıkmasına karşılık gelir. Vahşi tip, rahatsız edilmemiş beslenen hayvanlarda, bu motor program her 45 saniyede bir çok yüksek birdüzenlilikle başlatılır 18. Solucanlar başı sola, kuyruğu sağa bakacak şekilde konumlanır. Dışkı (EXC) turuncu renkte vurgulanır. Bu rakam6'dan değiştirilmiştir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
5. Video analizi
- Bir video oynatıcı programıyla bir video açın.
NOT: Windows Media Player Legacy v12 kullandık. Diğer video oynatıcı programları da kullanılabilir. - Tablo dosyasını hazırla. Sağlanan Şablon dosyasını açın (Ek Tablo 1). Video dosya adını ve solucan boyutunu (isteğe bağlı) belirlenmiş alanlara girin, ardından video oynatma başlatın.
- İlk dışkıyı tanımlayın ve kaydedin. Sıfır zamanını, solucanlar mikroskop altına alındığında kaydın başladığı an olarak tanımlayın. Solucanın anüs bölgesini gözlemleyin ve ilk salgılanma olayını belirleyin. Bu olayın zamanını (s cinsinden) tablonun İlk Dışlanması etiketli hücreye kaydedin.
NOT: İlk dışarı çıkma süresi solucanlar arasında değişir (örneğin, Solucan 1 = 5 s, Solucan 2 = 26 s, Solucan 3 = 34 s) çünkü kayıt öncesi son dışarının zamanı bilinmemektedir. - Sonraki dışkı olaylarını kaydedin: Oynatmaya devam edin ve her sonraki boşaltımı ardışık olarak belgeleyin (Dışkı 2, Boşaltım 3 vb.) toplamda 16 dışkı ortaya çıkana kadar.
- Döngü aralıklarını hesaplayın: Şablon, ardışık söküntüler arasındaki aralığı otomatik olarak belirler (örneğin, Dışkı 2 - Boşaltım 1; Dışkı 3 - Dışkı 2; ...). Bu aralıkları döngü uzunluğu olarak kullanın.
- Toplam döngü süresini belirleyin: 16 olay kaydedildikten sonra, şablon solucanın 15 döngüyü tamamlaması için gereken süreyi hesaplar. Bu değer, tablonun Toplam Zaman (Toplam Zaman) adlı hücresinde gösterilir. Bu işlemi her solucan için tekrarlayın.
NOT: Şu anda hiçbir otomatik yazılım C. elegans'ta dışkı döngülerini güvenilir şekilde tespit etmektedir. WMicrotracker gibi platformlar hareket parametrelerini (hız, kat edilen mesafe, solucan numarası veyavücut boyutu 14,15) nicelikte ölçemede etkili olsa da, anüs bölgesini izlemek ve kasılma veya dışaltı olaylarını tanımlamak için gereken çözünürlüğü sağlamazlar. Bu nedenle, borunning pumpingtestlerinde gözlemlenen sınırlamaya benzer şekilde manuel puanlama gerekliliğini koruyor 16.
6. Çevrim uzunluğu ölçümleri
- Döngü uzunluğu, ardışık iki dışkı arasındaki süre olarak hesaplanın. Tablo 1 ve Denklem 1'de açıklandığı gibi, bir dönemin bitiş zamanını, bir sonraki çevrimin bitiş zamanından çıkararak hesaplayın.
Döngü uzunluğu (n) (saniye cinsinden) = Zaman Çıkışı (n+1) - Zaman Çıkışı (n) Denklem 1
Döngü uzunluğu (1saniye) = 66 saniye (zaman çıkarımı 2 = 71 saniye) - (zaman çıkışı 1 = 5 saniye)) - Her veri seti için, dışkılama döngüsünün ortalama dönemi, standart sapma (SD) ve ortalama standart hatası (SEM) statistiksel analiz yazılımı kullanılarak hesaplanın.
7. Dışkılama döngüsünün ritmikliği veya düzenliliği
- Varyasyon katsayısı (CV), göreli değişkenliği tanımlamak için kullanılır ve verinin ortalamaya göre nasıl dağıldığını açıklar. Daha önce C. elegans6'da dışkılama döngüsünün düzenliliğini göstermek için kullanılmıştır. Her solucan için CV'yi Denklem 2'yi uygulayarak hesaplayın.
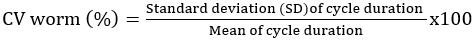 Denklem 2
- Her C. elegans sırıltı için, istatistiksel analiz yazılımı kullanılarak ortalama CV, standart sapma (SD) ve ortalama standart hatası (SEM) hesaplanın.
8. İstatistiksel analiz
- Üç bağımsız kopyada deneyler yapılacak ve her koşulda beş solucan analiz edilecektir. Veri normalliğini Shapiro-Wilk testi (α=0.05) ile değerlendirin; bu test n < 50 için önerilir.
- Çevrim uzunluğu ölçümleri normal dağılımı takip etmediği için, analiz, küçük örneklem boyutlarına sahip medyanlardaki farklılıkları tespit etmek için çok uygun olan parametrik olmayan Mann-Whitney testi ile gerçekleştirilmiştir. Buna karşılık, CV (%) verileri genellikle dağıtılır; eşit olmayan varyansları hesaba katmak için Welch'in düzeltmesiyle eşleşmemiş bir t-testi kullanarak analiz edin.
- Tüm istatistiksel analizleri istatistiksel analiz yazılımı kullanarak gerçekleştirin. İkiden fazla suş içeren deneyler için, örnek dağılımı sürekli doğrulama ile tek yönlü ANOVA gibi alternatif bir test uygulanır.
Sonuçlar
Tanımlanan video tabanlı test, erken PD için C. elegans RAC1/CED-10 modelinde bağırsak motilitesini nicel olarak değerlendirmek için uygulanmıştır. RAC1/CED-10 mutantlarının gelişimsel gecikmesi göz önüne alındığında, senkronize popülasyonlar vahşi tip kontrollerle evre uyumlu karşılaştırmalar sağlamak için ayarlandı. Bireysel solucanlar L4 aşamasında kaydedildi ve döngü uzunluğu ve düzenliliği belirlemek için ardışık 15 defekasyon döngüsü analiz edildi. Bu yaklaşım, bağırsak motor fonksiyonunun doğru ve yüksek çözünürlüklü ölçümünü sağlar ve C. elegans'ta erken PD fenotipleriyle ilişkili ince motor olmayan değişikliklerin tespit edilmesini sağlar.
Senkronize deneyler için RAC1/CED-10 hayvanlarında gelişimsel gecikme
C. elegans RAC1/CED-10mutantı 6'da gözlemlenen gelişimsel gecikme göz önüne alındığında, vahşi tipli hayvanlarla paralel yapılan senkronizasyon deneyleri zamansal ayarlama gerektirir. Bu gecikmeyi hesaba katmak ve video kaydı sırasında aşama eşleştirilmiş karşılaştırmalar sağlamak için, RAC1/CED-10 hayvanları aynı gün vahşi tip kontrollerden 6 saat önce plaka edildi.
Parkinson hastalığıyla ilişkili dışkı değişikliklerini araştırmak için RAC1/CED-10 solucanları
Kabızlık, motor-PD teşhisinden yirmi yıl önce tespit edilebilir ve hastalığın başlangıcını gösteren ilk tanınabilir belirtilerdenbiri haline gelir 17. Daha önce RAC1/CED-10 modelinin L4 gelişim aşamasında,nörodejenerasyon 6'nın başlangıcından önce motor olmayan değişiklikler gösterdiğini ve değişen bağırsak hareketliliğinin bunlardan biri olduğunu göstermiştik. Protokolde tanımlandığı gibi, bireysel solucanlar L4 aşamasında kaydedilmiştir. Şekil 3 , temsil eden bir RAC1/CED-10 solucanını göstermektedir.
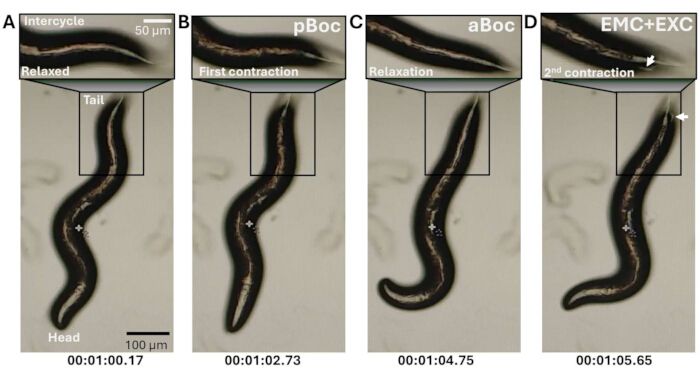
Şekil 3: C . elegans dışkılama döngüsü, RAC1/CED-10 mutant hayvanlar için görüntülerde. RAC1/CED-10 Mutantlarında Dışkı Döngüsü görüntülerde. Solucanlar başı aşağı konumdadır. Kuyruk bölgeleri, yatay kutularda vurgulanarak,6'da tanımlanan ve Şekil 2'de şematize edilmiş şekilde dışkılama motor adımlarının sırasını gösterir: (A) gevşemiş ön trakt, (B) arka vücut kasılması (pBoc), (C) ön vücut kasılması (aBoc) ve (D) dışkılma ile enterik kas kası kasılması (EMC+EXC). Döngü süresi aşağıda belirtilmiştir. Oklar fırlatılan malzemeyi işaretler. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Bağırsak hareketliliğini analiz etmek için kullanılan iki parametre döngü uzunluğu ve döngüdüzenliliği 13'tür. İlk olarak, Şekil 4'te gösterilen her solucandan 15 döngü ölçtük.
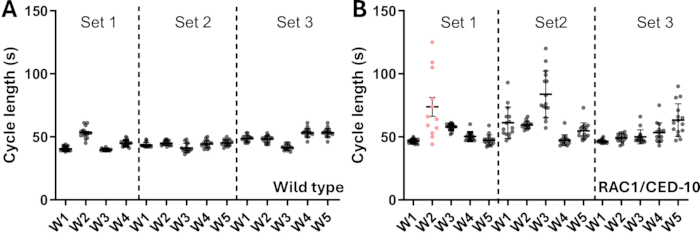
Şekil 4: Vahşi tipler (A) ve RAC1/CED-10 bireylerinin (B) döngü süresi. 1, 2 ve 3 kümeleri bağımsız kopyaları gösterir. Her nokta bir dışkılama döngüsünü temsil eder ve her solucan için 15 döngü vardır. B'deki pembe W2, 15 döngüyü tamamlamadığı için daha fazla analiz için elendi. W = solucan. Bu rakamda istatistiksel analiz yapılmadı. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Bireysel solucanlar, farklı deneysel kopyalar arasında W (W1, W2 vb.) ile adlandırıldı (Set = 1, 2, 3). Her solucan (W) için 15 dakika boyunca 15 ölçüm yapıldı. Vahşi tipli hayvanların ilk deney setinde (Şekil 4A, Set 1), bir solucan genç yetişkin olduğu için hariç tutulmuştur; çünkü L4 değil. RAC1/CED-10 durumunda, veri işlendikten sonra 15 döngü 15 dakika içinde tamamlamadığı için bir solucan atıldı. Bu nedenle, kaç döngünün tamamlandığını bilmek için saat uygulamasını kullanmanızı öneririz, çünkü RAC1/CED-10 solucanları oldukça düzensizdi.
Bu bireysel değerlere dayanarak, vahşi tip solucanlar ve RAC1/CED-10 mutantları için çevrim uzunluğunun ortalama ve standart sapması hesaplandı (Tablo 1 ve Şekil 5). Daha önceyayımlandığı gibi, RAC1/CED-10 solucanları vahşi tip solucanlara göre daha uzun ve daha az düzenli döngüler sergiler. Vahşi tip solucanlar, RAC1/CED-10 mutantlarına (55 saniye ± 12 saniye) göre daha kısa döngüler gösterir (46 saniye ± 5 saniye).
Tablo 1: Bireysel solucanlar için salgılama döngüsü ölçümlerinin temsil veri seti. Tablo, üç hayvandan toplanan temsil verileri özetlemektedir. Her solucan için veri seti, video dosyası tanımlayıcısı, vücut boyutu (μm), bireysel dışkılama olaylarına karşılık gelen zaman noktaları (s), 15 ardışık döngü boyunca hesaplanan döngü uzunlukları ve toplam kayıt süresi içerir. Döngü uzunluğu, ardışık dışkı zaman noktalarının çıkarılmasıyla elde edildi (örneğin, solucan VID_154028 için ilk döngü uzunluğu 66 saniyeydi ve 71-5 saniye olarak hesaplanmıştır). Kalan girişler, veri setindeki tipik değişkenliğe örnekler vererek iki ek solucan için benzer ölçümleri göstermektedir. Bu tabloyu indirmek için lütfen buraya tıklayın.
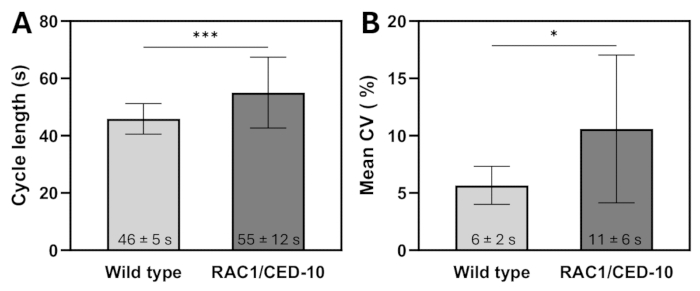
Şekil 5: Dışkılama döngüsü parametreleri. (A) Dışkılama döngüsü uzunluğu ve (B) Vahşi tip ve RAC1/CED-10 solucanlarının ortalama CV'si. Veriler ortalama SD ± gösterir. N=3 n=5. Dışkılama döngüsü uzunluğu için parametrik olmayan Mann-Whitney testi uygulandı. Ortalama CV verileri için eşleşmemiş t-testi ve Welch düzeltmesi uygulandı. p < 0.001 * p < 0.05. İstatistiksel analiz bilgileri için 8. adıma bakınız. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Döngü düzenliliği,deneydeki 18'deki her solucan için varyasyon katsayılarının ortalaması olan ortalama varyasyon katsayısı (CV) kullanılarak hesaplanır. Şekil 5B , RAC1/CED-10 mutant hayvanlarında vahşi tipli hayvanlara kıyasla daha fazla değişkenlik göstermektedir. Vahşi tiplerde ortalama CV %6 ± %2 iken, RAC1/CED-10 mutantlarında %11 ± %6 oranındadır.
Ek Tablo 1:Caenorhabditis elegans'ta dışkılama döngüsü uzunluğunun hesaplanması için şablon. Kullanıcılar, her solucan dosyasının adını ilk sütuna girmeli ve isteğe bağlı olarak solucanın vücut uzunluğunu kaydedebilir. Her dışlama olayına (Dışkı 1-16) karşılık gelen zaman (s) video oynatımından belirlenen sırayla girilir. Şablon, ardışık boşaltım arasındaki aralığı otomatik olarak hesaplar (Zaman atılımı N - Zaman atılımı N-1), bu da dışkılama döngüsü uzunluğunu temsil eder. 16 çıkarma olayı girildikten sonra, on beş tam döngüyü tamamlamak için gereken toplam süre otomatik olarak hesaplanır ve Toplam Zaman (mm:ss) hücresinde görüntülenir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
C. elegans, prodromal PD'yi incelemek için güçlü bir model olarak
Çoğu nörodejeneratif hastalık modeli geç evrepatolojiye odaklansa da, erken hastalık başlangıcını incelemek teknik olarak zordur. Fare, sıçan veya primat gibi geleneksel memeli modelleri uzun yaşam döngüleri ve yüksek maliyetlerle sınırlandırılır. Mikroskobik nematod C. elegans , 3 haftalık ömrü, 3 günlük üreme döngüsü ve genetik yol kavrayabilirliği ile bu sınırlamaları aşar - bu da onu nörodejenerasyonun verimli, büyük ölçekli çalışmaları için ideal bir sistemyapar 6.
C. elegans RAC1/CED-10 mutanı, erken PD patogenezini incelemek için üç temel avantaj sağlar. Birincisi, kesin zamansal çözünürlüğü, nörodejeneratif olayların iyi tanımlanmış gelişim aşamaları boyunca takip edilmesinisağlar 6. İkinci olarak, model genetik yol açılabilirlik, düşük bakım gereksinimleri ve yüksek verimlilik uyumluluk sayesinde olağanüstü deneyselyönlülük sunar 6,7. Üçüncüsü, C. elegans'ın RAC-1/CED-10 modelinde de dahil olmak üzere endojen α-synuklein homologu olmaması nedeniyle değerli bir avantaj sağlar. Araştırmacılar, α-sinüklein girişimi olmadan pre-klinik PD mekanizmalarını inceleyebilir; bu da daha ileriaşamaları işaret eder 6. Bu durum, modeli ilk patojenik olayları incelemek ve daha sonra α-sinuklein ifadesinin ileri patogenezi incelemek için entegrasyonu için mükemmel bir araç olarak konumlandırır. Son olarak, CED-10'un insan RAC1 ile homolojisinin evrimsel korunması, doğrudan translasyonel önemisağlar 10,20.
Burada tanımlanan C. elegans modeli, farmakolojik testleriçin oldukça uygundur (17,21). RAC-1/CED-10 mutantları gelişimsel gecikme gösterdiği için, kimlikleri vahşi tipe göre gizlenemediği için ilk adımda kör etme mümkün değildir. Ancak farmakolojik taramalarda, verileri toplayan deneyci ve analiz eden kişinin tüm deneysel değişkenlerden habersiz kaldığı çift kör bir tasarım benimsenerek önyargı en aza indirilebilir.
Kabızlık, prodromal fazda neredeyse tüm PD hastalarını etkiler ve genellikle motor semptomlardan öncegelir 5. C. elegans, bu erken gastrointestinal işlev bozukluğunu incelemek için benzersiz avantajlar sunar. İnvaziv müdahaleler gerektiren memeli modellerinin aksine, nematodun şeffaflığı ve sadeliği, bağırsak hareketlilik kusurlarının nicelendirilmesi için kritik olan son derece stereotipli dışkılama motor programının invaziv olmayan, gerçek zamanlı gözlemini mümkün kılar. C. elegans'ın dışkısının kısa yaşam döngüsü ve hassas ritmikliği, fonksiyonel bozuklukların hızlı ve tekrarlanabilir analizini mümkün kılar. RAC1/CED-10 mutantlarında, dışkılama zamanlamasındaki sapmalar, prodromalPD 6'da gözlemlenen kabızlık benzeri fenotipleri yansıtır. Bu bulgular, karmaşık memelilerde (örneğin fareler, primatlar) daha sonraki doğrulama için temel bir çerçeve sağlarken, RAC1 sinyalini enterik disfonksiyonla doğrudan ilişkilendirir.
Mekanik öneminin ötesinde, RAC1/CED-10 modeli çeviri faydası da sunar. Dışkılama testi basit, tekrarlanabilir ve ölçeklenebilirdir, bu da onu erken aşama ilaç taraması için uygun kılar. Döngü zamanlamasını veya düzenliliğini normalleştiren bileşikler, memeli modellerinde test için hızla önceliklendirilebilir ve terapötik adaylar için maliyet etkin bir filtre sağlar. Gastrointestinal disfonksiyon birçok nörodejeneratif hastalıkta yaygınolduğundan, bu test PD'nin ötesine de uygulanabilir ve hem keşif aracı hem de preklinik araştırmalara çeviri köprüsü olarak hizmet verebilir.
Protokoldeki kritik adımlar
Prodromal PD ile ilgili önemli bir motor olmayan fenotip olan RAC1/CED-10 mutantlarında bağırsak dismotilitesini incelemek için geliştirilmiş bir metodoloji sunuyoruz. Yerleşik dışkıtestleri 18,22'ye dayansa da, bu protokol RAC1/CED-10 mutantlarının ortaya çıkardığı benzersiz zorlukları ele alarak sağlam ve tekrarlanabilir sonuçlar sağlar.
RAC1/CED-10 mutantları için temel adaptasyonlar şunlardır:
Senkronizasyon ayarlamaları: RAC1/CED-10 mutantları, vahşi tipli suşlara kıyasla daha düşük doğurganlık gösterir (kişisel gözlem). Daha düşük nesil verimini telafi etmek için, senkronizasyon sırasında aşağıdaki ayarlamaları uygulayın: Levha parçası yöntemi - artan gelişimsel değişkenliği hesaba katmak için vahşi tipli suşlar için kullanılan hacmin yaklaşık 2 katı daha büyük bir aşı kullanın. Gravid yetişkin yöntemi - Sonraki deneyler için yeterli embriyo sayısını sağlamak amacıyla standart 10 yetişkin yerine 15-20 yetişkin transferi yapılır.
Çamaşır suyu hassasiyeti: RAC1/CED-10 mutantlarından alınan embriyolar, hipoklorit tedavisine karşı artan hassasiyet gösterir. Hasarı en aza indirmek için, vahşi tip protokollere kıyasla çamaşır suyu maruz kalma süresini %20-%30 oranında azaltın ve tedaviden sonra embriyo bütünlüğünü mikroskobik olarak doğrulayın.
Gelişimsel gecikme değerlendirmeleri: RAC1/CED-10 mutantları, vahşi tip solucanlara göre daha yavaş olgunlaşır10. Kayıtlar için doğru senkronizasyonu sağlamak için, vahşi tip solucanlarla video analizlerine başlayın; böylece zaman referansı oluşturulur ve mutantları kronolojik yaş yerine uyumlu morfolojik aşamalarda (örneğin, vulval morfoloji) kaydedebilirsiniz.
İş akışı gerekçesi: Vahşi tip C. elegans ile ilk deneyler yapmak çevresel değişkenliği kontrol eder ve normal dışkılama ritimleri için bir referans sağlar. RAC1/CED-10-10 mutantlarındaki gelişimsel gecikmeler nedeniyle, kayıt programları aşama eşleştirmeli (yaş eşleştirmesi yerine) karşılaştırmalara öncelik verecek şekilde uyarlanmalıdır.
Suşlara özgü zamanlama değerlendirmeleri: Mutantlarda gelişimsel gecikmeler, yalnızca kronolojik yaşa dayanmak yerine genotipler arasında gelişim aşamalarını eşleştirmeye vurgu yaparak esnek deneysel zamanlama gerektirir.
Nematod modelinin sınırlamaları
C. elegans, memeli sistemlerinin anatomik karmaşıklığı ve yol gerekliliğinden yoksundur - bazı translasyonel çalışmalar için bir sınırlama - sadeliği ayrık biyolojik fonksiyonları incelemek için avantajlıdır. Bağırsak hareketliliğine odaklanmak bu gücü kullanır; çünkü nematodun sade fizyolojisi, belirli fonksiyonel parametrelerin hassas analizini sağlar. Terapötik doğrulama için tamamlayıcı memeli çalışmaları gerekli olsa da, C. elegans korunan biyolojik süreçlerin mekanik incelemesi için olağanüstü bir platform sunar21,23.
Modelimizde ayrıca endojen α-sinuklein yoksun; bu durum, kabızlığın prodromalsemptom 3 olarak ortaya çıkabileceği erken ve preklinik PD (Parkinson hastalığı) incelenmesi için faydalıdır. Dışkılama döngüsü uzunluğu objektif ve yüksek verimliliğe sahip bir ölçüm sunar, ancak gastrointestinal işlev bozukluğunun yalnızca bir yönünü yansıtır ve hastalığa özgü değildir.
Bu test, insanPD 5'te görülen ilerleyici α-sinuklein toplama, karmaşık nörodejenerasyon veya yaşa bağlı sistemik patolojiyi yakalamasa da, dopaminergik ve GABAerjik fonksiyonun değiştiğini ve Rac1sinyalizasyonu 6'nın bozulduğunu gözlemleyerek bu modelin mekaniksel önemini vurgulamaktadır. Bu nedenle, erken dönem PD ile ilişkili nöro-gastrointestinal mekanizmaların ve korunan yolların incelenmesinde değerli olmaya devam etmektedir.
Açıklamalar
Yazarların açıklayacak hiçbir şeyi yok.
Teşekkürler
A.M.J., Barselona Otonom Üniversitesi'nde Biyoteknoloji Doktora programı kapsamında doktora bursunu (FPU18/05190) kabul etmektedir. AL ve AMJ, MCIN/AEI//10.13039/501100011033/FEDER "Una manera de hacer Europa" tarafından PID2021-122645OB-100 ve PID2024-1576370B-100 fonları kabul etmektedir; Ar-Ge alanında "Severo Ochoa" Mükemmeliyet Merkezleri Programı CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446 ve Avrupa Birliği'nin Horizon Europe araştırma ve inovasyon programı, hibe anlaşması No 101057527 (NextGEM) kapsamında yer almaktadır. EDC, Fundació d'Estudis Superiors en Ciències de la Salut (FESS) ve Fundació Institut de Recerca i Innovació en Ciències de la Vida i la Salut de Catalunya (IRIS-CC) tarafından finanse edilen APR-2024 hibesinden (PMI24006) desteği kabul etmektedir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 12 kuyu kültürü çok kuyu plakaları, aranmış, steril | Labbox | CCPP-012-100 | |
| Agar | VWR | AAA10752-0E | NGM plakalarını hazırlamak için |
| Bactopeptone | VWR | 90000-264 | NGM plakalarını hazırlamak için |
| Bleach | Herhangi bir ev | Ağartma işlemi için | |
| CaCl2 | Labkem | CACH-02P-1K0 | NGM plakalarını hazırlamak için |
| Santrifüj Sorvall ST8 | Sorvall | 15194923 | |
| Kolesterol | Sigma-Aldrich | C8667-25G | NGM plakalarını hazırlamak için |
| Saat | Windows | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| Etanol | Panreac | 131086.1214 | NGM plakalarını hazırlamak için |
| İnkuluçka makinesi 20 derece ve derece; C | Ekojen | CIR180 | |
| KH2PO4 | Sigma-Aldrich | P0662 | M9 tamponu hazırlamak için |
| KPO4 | Sigma-Aldrich | P5655 + P3786 | KH2PO4 + K2HPO4; NGM plakalarını hazırlamak için |
| MgSO4 | Sigma-Aldrich | M7506 | NGM plakalarını hazırlamak; M9 tamponu hazırlamak için |
| Mikroskop | Olympus | Olympus BX51 | |
| Na2HPO4 | Sigma-Aldrich | S9763 | M9 tamponu hazırlamak için |
| Na2HPO4 | Sigma Aldrich | 7558-79-4 | M9 tamponu hazırlamak için |
| NaCl | Sigma-Aldrich | S5886 | NGM plakalarını hazırlamak; M9 tamponu hazırlamak; LB |
| NaOH | Sigma-Aldrich | 567530 | Ağartma işlemi için; LB |
| Windows 'de Kesme Aracı; | Windows | v 11.2504.42.0 | |
| Tripton | CONDA | 1612 | LB |
| Maya ekstraktı | CONDA | 1702 | LB |
Kaynaklar
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
Yeniden basım ve izinler
