Bu makale, güve koku reseptör nöronlarının kültürlenmesi için bir protokol sunar ve uzun vadeli hayatta kalma ve farklılaşma sağlar. Bu yaklaşım, enzimatik ve mekanik dissosiyasyonu kullanarak asılı sütun kültürü tekniğiyle son derece zorlu in situ kayıtlara alternatif sunar ve patch-clamp kayıtları gibi fonksiyonel çalışmaları mümkün kılar.
Yöntem makalesi
Güve Koku Reseptör Nöronlarının Birincil Kültürleri
Bu makalede
Özet
Özet
Böcekler, çiftleşme, beslenme ve sosyal etkileşimlerle ilgili birçok davranış için koklama alanlarına kritik derecede bağlıdır. Son derece hassas koku alma reseptörü nöronları (ORN) geliştirmişlerdir. Yerinde hücre dışı kayıtlar genellikle bu hücrelerin yanıt profilini, kodlama özelliklerini ve fizyolojisini analiz etmek için kullanılsa da, sinyal iletim yollarının ayrıntılı analizi patch-clamp kayıtları gerektirir. Bu elektrofizyolojik tekniğin kullanımını kolaylaştırmak ve hücre içi ve ekstrahücre ORN çözeltilerinin bileşiminin iyi bir kontrolünü sağlamak için, bu makale böcek ORN'lerinin kültürlenmesi için bir protokolü tanımlar. Böcek ORN'leri, yardımcı hücreler tarafından yakından çevrilmiş olduğundan, yetişkin ORN'lerin akut ayrışmasını ve zarlarına doğrudan erişimi önler; bu protokol, ORN'lerin farklılaşmasından önce anten hücrelerinin güve pupalarından diseksiyonunu tanımlar. Gelişen antenler enzimatik ve mekanik olarak ayrılır ve ardından ORN'lerin birkaç hafta boyunca farklılaşmasını ve hayatta kalmasını destekleyen koşullu bir ortamda 'asılı kolon tekniği' ile ters olarak kültürlenir. Bu yöntemle kültürlenen ORN'lar, patch-clamp kayıtları gibi fonksiyonel testler için uygundur.
Giriş
Böcekler, çevrelerinde gezinmek, yiyecek kaynaklarını bulmak, eşlerini belirlemek ve yırtıcılardan kaçınmak için koklamaya büyük ölçüdegüvenirler 1,2. Koklama sistemleri olağanüstü verimli ve ince ayarlanmıştır; bu da yüksek hassasiyet ve özgüllükle çok çeşitli uçucu kimyasal ipuçlarının tespit edilmesinisağlar 3. Koku alanlar esas olarak antenlerde, yani ana koku alma organlarında bulunan sensillada bulunan koku reseptörü nöronları (ORN) ile Diptera'da sivrisinek ve Drosophila4 gibi Diptera'da ikincil koku yapıları olarak hizmet eden maksiller palplarda bulunan koku alma reseptörü nöronları (ORN) tarafından tespit edilir.
Koklu sinyal iletiminin altında yatan moleküler mekanizmaları araştırmak için, bireysel ORN'lere doğrudan elektrofizyolojik erişim gereklidir. Nörofizyolojide altın standart bir teknik olan yama-kelepçe kaydı, iyon kanallarının, reseptörlerin ve sinyal yollarının ayrıntılı fonksiyonel karakterizasyonunu sağlar. Böcek ORN'lerinden yerinde yama kelepçesi kayıtları mümkündür ancak küçük boyut, aksesuar hücrelerdeki yoğun paketleme ve bu nöronların kütiküler kapsüllenmesi nedeniyle teknik olarak zordur. Bu zorluklar, dev saturnid güvesi Antheraea polyphemus5'ten ekstrüziye dıştaki dendritlerin yamalanması veya Drosophila 6,7'de yarı sağlam veya anten dilimli preparatlardan ORN'lerin yamalanması ile aşıldı. Yerinde kayıtlar normalde farklılaşan nöronların kaydedilmesini mümkün kılsa da, bu yaklaşımlar önemli teknik zorluklar yaratır ve daha erişilebilir deneysel koşullar sağlayan alternatif yaklaşımlara olan ihtiyacı vurgular.
Bu makale, güve antenlerinden ORN'lerin kültürlenmesi için sağlam bir protokolü tanımlar. Protokol, Lepidoptera türlerinin geniş bir yelpazesine uygulanabilir gibi görünmektedir, ancak henüz diğer böcek gruplarında test edilmemiştir. Bu yöntem, ORN'lerin in vitro olarak korunması ve büyümesini mümkün kılarak bu hücrelere doğrudan erişim sağlar; patch-clampçalışmaları 8,9,10 ile farmakolojik ve görüntüleme çalışmaları için bu hücrelere doğrudan erişim sağlar. Bu kültür sistemi, koklu transdüksiyon yollarının ve ilgili moleküler bileşenlerin fonksiyonel analizi için değerli bir platform sağlar ve yerinde kayıtlarla ilgili birçok kısıtlamayı aşmaktadır.
Protokol
Böceklerle ilgili çalışmalar için etik onay ve uyum beyanları zorunlu değildir. Tütün şahin güvesi Manduca sexta (Lepidoptera, Sphingidae)11, bal arısı Apis mellifera12 ve lahana güvesi Mamestra brassicae (Lepidoptera, Noctuidae)13 üzerinde birincil böcek ORN kültürleri tanımlanmıştır. Tanımlanan protokoller bazı benzerlikler (pupa evresinden diseksiyon) ve farklılıklar (kültür ortamı, büyüme yüzeyi) göstermektedir. Burada tanımlanan protokol, M . brassicae, Spodoptera littoralis, Bombyx mori ve Agrotis ipsilon gibi birkaç güve türünden ORN'lerin kültüründe değişiklik yapılmadan başarıyla kullanılmıştır. Tüm adımlar laminar akış başlığı altında yapılır (2-den 8-e kadar bölümler azeptik olarak yapılacaktır).
1. Böcekler
- S. littoralis (Lepidoptera: Noctuidae) arka larvaları yapay beslenmede 22-24 °C, %60-70 göreli nem ve daha önce tanımlandığı gibi 16:8 saat ışık:karanlık döngüsündetutulur.
- Pupal aşamada erkekler ve dişiler ayrı ayrılır. Çıkıntıdan sonra, yetişkin erkekleri dişilerden ayrı plastik kutularda tutun ve %20 sakaroz solüsyonuna ücretsiz erişim sağlayın.
- Her gün yeni pupalar topla ve 22 °C'de tut. Bu koşullarda pupasyon 14-16 gün sürer. Erkekler veya kadınlarla deneyler yapın.
2. Koşullu Grace kültür ortamının hazırlanması
NOT: Güve ORN'larını kültürlemek için kullanılan Grace's ortamı, Manduca sexta hücre hattı (MRRL-CH115; bu hücre hattı talep üzerine temin edilebilir) ile şartlandırılmıştır. MRRL-CH1 alt kültürü her 3 haftada bir (yaklaşık %80 birleşme) normal havada 20 °C'de uygulanır. Hücrelerin birleşme oranının %90'ını aşmasına izin vermeyin, çünkü bu hücrelerin ayrılmasına ve hücre ölümü seviyelerinin artmasına yol açar. Her pasajda aşağıdaki adımları gerçekleştirin.
- 10 mL'lik pipet ile bir şişenin alt yüzeyinden nazikçe yapışan hücreleri ayırın.
- 1,5 ml hücre süspansiyonunu 4 şişeye yayın ve her termosa %10 fetal sığır serumu (FBS) ile takviye edilmiş 6,2 mL Grace's ortamı ekleyin.
- Hücre geçişinden iki gün sonra, son hazırlanan şişelerde kontaminasyon yoksa, önceki pasajın kalan 3 şişesinden kültür ortamı toplanır. Filtreleyin (0,2 μm) ve koşullanmış Grace's ortamını 5 °C'de saklayın. Bunu 6 aya kadar kullanın.
3. Papain Hazırlanma
NOT: Papain, enzimatik aktivite kaybını zamanla en aza indirmek için konsantre aliquotlarda (100 mL 10 mg/mL) ve -80 °C'de saklanmalıdır. Bu nedenle, papain çözücülerinin alikotları ayrı ayrı hazırlanmalıdır. Etilen diamintetraasetik asit (EDTA) ve L-Sistein aktifpapain 16'ya eklenir. Papainle karıştırıldığında, nihai konsantrasyonları 0.5 mM EDTA, 1 mM Sistein ve 1 mg/mL papain (~10 U/mL)'dir.
- Papain aliquotları: Papain (25 mg) ile 2,5 mL steril Hanks Dengeli Tuz Çözeltisi (HBSS) ile %20 gliserol ile seyreltirin. 100 μL aliquotlarda -80 °C'de tutun.
- Papain çözücü aliquotları: 27 mL mannitol pipetleyin ve mannitol ile osmotik basıncını 380 mOsmol/L'ye ayarlayın. 5,6 mg EDTA ve 5,3 mg L-Cystein ekleyin. pH 6.7'ye ayarlayın. 0.2 μm düşük bağlanma filtreleriyle sterilize edin. 900 μL aliquot içinde -20 °C'de tutun.
4. Kültür medyasının hazırlanması
NOT: Tüm medya maddeleri sterildir. Sterilizasyonlar 0.2 μm steril filtrelerle yapılır.
- 3+2 orta:
- 30 mL'lik bir tüpte 3 parça Leibovitz ortamı (16,4 mL), 2 parça Grace ortamı (11 mL) ve %2 penisilin-streptomisin (0,6 mL) ekleyin. Osmotik basıncı 370 mOsmol/L (yaklaşık 150 mg mannitol) ve pH 6.7'ye (NaOH 1 M) ayarlayın.
- Ortaya çıkan 28 mL 3+2 ortamdan, 5 mL filtre edilip 7 mL'lik bir tüpe aktarılır. Kalan 23 mL (3+2 medek) içine birkaç feniltiore kristali (yaklaşık 1-2 mg) ekleyin, ardından sterilize edilip 1,5 mL'yi 7 mL'lik bir tüpe (tüp #1) ve daha sonra pupaları disseksiye almak için kullanılan 6 Petri kabına aktarın; bu kaplar aşağıda 'diseksiyon tabakları' olarak adlandırılır.
NOT: Feniltiore, anten dokularının kararmasına yol açacak oksidazaktivitesini 17,18,19 inhibe eder.
- Koşullu 3+2 ortam:
- 30 mL'lik bir tüpe 67 mg mannitol ve Leibovitz ortamı ile filtresine (0,2 μm) 9 ml ekleyin. Sonra 2 parça koşullu Grace's ortamını ekleyin.
- Mannitol miktarını, Leibovitz ve Grace ortamının osmotik basıncına göre ayarlayın; böylece koşullandırılmış 3+2 ortamın osmotik basıncı 370 ± 15 mOsmol/L (tüp #2) olur.
- HBSS ortamı: 12 mL HBSS ve 0,25 mL penisillin-streptomisin ekleyin. Osmotik basıncı 370 mOsmol/L (yaklaşık 216 mg mannitol), pH 6.7'ye (HCl 1 M) ayarlayın ve sterilize edin (tüp #3).
- HBSS-EGTA ortamı: 7 mL'lik bir tüpe 2 mg etilen glikol-bis (β-aminoetil eter)-N,N,N',N'-tetraasetik asit (EGTA) ve önceden hazırlanmış 2 mL HBSS çözeltisi ekleyin. pH 6.7'ye (NaOH 1 M) ayarlayın ve sterilize edin (tüp #4).
5. Pupaların diseksiyon (Şekil 1)
NOT: Pensleri periyodik olarak %70 etanol ve emici kağıtla temizleyin ve ardından hızlıca alevle ateşleyin. Siyah bir zeminde diseksiyon, antenin görselleştirilmesini kolaylaştırır.
- 2,5 ila 3 günlük pupaları musluk suyunda ve ardından damıtılmış suyun altında durulayın.
- Laminar akış başlığının altında bir Petri kabına 20-25 pupa ekleyin.
- Kaputun altında, alev 2 küye. Birini %70 etanol, diğerini steril (otoklavlanmış) damıtılmış su ile doldurun.
- 4 pupa ile penss alın ve yaklaşık 10 saniye %70 etanol, ardından steril damıtılmış suya batırın ve onları diseksiyon Petri kabının kapağına koyun.
- Her antenin etrafındaki kütikülü alevli forsepslerle kesin ve anten çiftini 3+2 ortamla doldurulmuş bir diseksiyon çanaklarına aktarın (Şekil 1A,B).
- 3+2 ortamda, anten gelişiminin gerçekleştiği tüpleri kapatan tüm dokular çıkarılarak sadece anten ve pupal kütikül kalsın (Şekil 1C), ardından anteni (Şekil 1D) 3+2 ortamla doldurulmuş yeni bir çanakta aktarın.
NOT: Şekil 1E-J diseksiyon sürecinin görüntülerini göstermektedir. - Antenin geliştiği tüpü ince forseps ile açın ve anteni nazikçe çıkarın. Her antenin tek bir parça olarak çıkarılması, aşağıdaki durulamaları (7.1-7.9. adımlar) kolaylaştırır, çünkü bunlar tüpün dibine daha yatkın olur.
- Steril bir Pasteur pipeti kullanarak, tabaktan biraz ortamı aspire edin ve pipetin iç yüzeyini ıslatmak için tekrar kabın içine atın. Bu, antenlerin pipetin içindeki cama yapışma eğilimini azaltmaya yardımcı olur. Sonra, pipetle birlikte disseksiyon edilen anteni 1.5 mL 3+2 (tüp #1) ile doldurulmuş 7 mL tüpe aktarın.
- 20 pupa için 5.4 - 5.8 numaralı adımları tekrarlayın ve #1 tüpte 20 çift anten toplayın.
6. Petri tabaklarının hazırlanması
NOT: Anten hücreleri, asılı kolontekniği 20 kullanılarak kültürlenir. Bu, Petri yemeklerinin hazırlanmasını gerektirir. Önceden yapılabilir.
- Cam parçalarını (6-7 mm × 6-7 mm) bir sürgüden kesin. Etanol içinde tutun.
- Kaputun altında, cam parçalarını alevle ısıtın, hemen steril (otoklavlanmış) vazeline (örneğin Vaseline) batırın ve Şekil 2A'da gösterildiği gibi Petri kaplarına yerleştirin.
7. Hücrelerin ayrılması ve kaplaması
NOT: Aşağıda açıklanan ortam değişimlerinde, anten dokusunu atmadan steril bir Pasteur pipeti kullanarak mümkün olduğunca çok ortamı çıkarmak önemlidir. Soğuk ışık kaynağının kolu, ortamda yüzen antenleri daha net görselleştirmeye yardımcı olur. Enzimatik ayrışma ve mekanik triturasyon, anten hücrelerinin santrifüjlenerek papaini çıkarmasını önlemek amacıyla ardışık olarak ve aynı anda değil, ardışık olarak yapılır.
- Oda sıcaklığında bir papain aliquot ve bir papain çözücü aliquot ekleyin.
- Tüp #1'deki 3+2 ortamı, 1 mL HBSS (tüp #3'ten) ile diseksiyon edilmiş antenle değiştirin ve 10 dakika bekleyin.
- HBSS ortamını 1 mL HBSS-EGTA ile değiştirin (tüp #4'ten) ve 5 dakika bekleyin.
- HBSS-EGTA orta modunu 1 mL HBSS ile değiştirin ve 5 dakika bekleyin.
- HBSS orta taburunu 1 mL HBSS ile değiştirin ve 5 dakika bekleyin.
- Papain çözücüsünü (900 μL) papain aliquot'a (100 μL) aktarın. Ortaya çıkan papain seyreltmesinin pH'ını (0,2-0,5 μL HCl 1M) 3+2 çözeltinin sarı rengiyle aynı değilse ayarlayın. pH ölçümünü yapmayın, çünkü bu çözeltiyi kirletecektir.
- HBSS ortamını 1 ml taze seyreltilmiş papain çözeltisi ile değiştirin ve 10-15 dakika kuluçka yapın. Oda sıcaklığında enzimatik sindirim yapın.
- Papain çözeltisini 1 mL HBSS + 50 μL FBS ile değiştirin ve papain aktivitesinin etkisiz hale gelmesi için 5 dakika bekleyin.
- 1 mL HBSS ile iki kez 5 dakika boyunca durulayın.
- HBSS orta malzemeyi 1 mL 3+2 ortam ile değiştirin.
- Bir Pasteur pipetinin ucunu Bunsen brülörüyle ateşle parlatarak açılış çapını 50-100 μm'ye düşürür (yeterince pratik ile göz ile değerlendirilebilir).
- Anten hücrelerini mekanik olarak ayırın; ateşle cilalanmış Pasteur pipetiyle ortamı nazikçe ileri geri pipet ederek hücre kümesi görünmez. Medya bulanık görünmelidir.
- 2 mL 3+2 ortam ekleyin ve hücreleri Pasteur pipetiyle ortamda yeniden süsle tutarak homojen bir hücre yoğunluğu sağlanır.
- Hücre süspansiyonunu 20 Petri kabına (her çanak başına yaklaşık 150 μL) ayırın (Şekil 2B).
- Hücrelerin 45 dakika boyunca yerleşmesine izin verin.
- Her tabaktaki 3+2 ortamı 150 μL koşturmalı 3+2 ortam ile %5 FBS ile değiştirin.
- Bir kapak kuşağı ekleyin (Şekil 2C) ve kapları Parafilm ile kapatın.
- Tabakları ters çevirin (Şekil 2D) ve onları 20 °C sıcaklıkta iki nemli emici doku tabakası arasında bir kuluçka makinesinde tutun.
8. Kültür ortamının değişimi
NOT: Kültür ortamının yarısını her 4-7 günde bir değiştirin.
- Olası bir kontaminasyon olup olmadığını kontrol etmek için tabakları kontrol edin. Bu genellikle renk değişikliğine yol açar (sarıdan kırmızımsıya).
- Tabakları açın ve kapak kapaklarını nazikçe çıkarın. P100 mikropipetiyle 75 μL ortamı çıkarıp yerine %5 FBS ile takviye edilmiş 85 μL taze 3+2 ortam ile değiştirin.
- Örtükleri geri koyun, kapları Parafilm ile mühürleyin ve onları 20 °C sıcaklıkta nemlendirilmiş emici doku katmanları arasında inkubatörde eskisi gibi saklayın.
Sonuçlar
Bu protokol, böcek ORN'larının kültürde 3-5 hafta canlı tutulmasına olanak tanır. ORN'ler, küçük yuvarlak veya badem şeklinde hücre gövdesi ve ince süreçlerle (nöritler) tanımlanan morfolojileriyle kolayca tanımlanabilir; bu süreçler kültürde sadece bir gün sonra net görülebilir (Şekil 3A) ve birkaç gün sürmeye devam eder (Şekil 3B-D). İki nöron popülasyonu, somalarının büyüklüğüne göre ayırt edilebilir: nöronların çoğunluğu için 5-7 μm, azınlık için ise 10-12 μm (Şekil 3D). Büyük olasılıkla, küçük nöronlar ORN'dirken, büyük nöronlar mekanik duyucu nöronlardan oluşur. Nöronlar ya monopolar ya da bipolardır ve tek başta, küçük kümeler halinde veya ayrışmamış antensel ekplantlar içinde bulunur. Bu hücrelerin nöronal kimliği, böcek nörobiyolojisindeki nöronları etiketlemek için altın standart bir araç olan anti-HRPantikorları 13 ile immünositokimya ile doğrulandı21. 2 hafta sonra, muhtemelen glial hücreler olan nöronal olmayan hücreler, ORN'lerin büyüyüp nöritlerini uzattığı tabak yüzeyinde sürekli bir tabaka oluşturur (Şekil 5A,B).
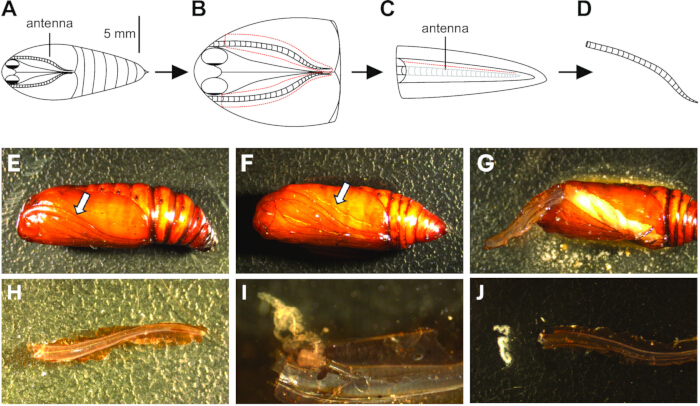
Şekil 1: Pupaların diseksiyonu. (A) Pupa'nın ventral tarafı. (B) Kütikül, her iki antenin etrafından (kırmızı kesik çizgi) kesilir, pupaya çok derin girmemeye ve gelişmekte olan yetişkin dokuları delmeye özen gösterir. Her anten nazikçe çıkarılır ve 3+2 ortamla doldurulmuş bir çanakta aktarılır. (C) Pupal kütiküle bağlı kalan tüm anten dışı dokular çıkarılır ve anten temiz 3+2 ortamlı yeni bir çanakta aktarılır. Gelişen anteni kaplayan şeffaf zar dikkatlice kesilir (kırmızı kesik çizgi). (D) Anten nazikçe çıkarıldı. (E) A'nın eşdeğerini gösteren bir görüntü. Beyaz ok antene işaret ediyor. (F) B'nin eşdeğerini gösteren bir görüntü. Beyaz ok, kütikülde yapılan kesiyi işaret eder. (G) Anten nazikçe kaldırılır (H) ve sonra çıkarılır. (I) Geliştiği zar bölündükten sonra, anten distal ucundan tabanına (J) doğru itilir ve ardından çıkarılır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
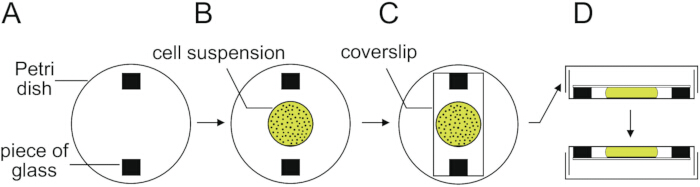
Şekil 2: Anten hücrelerinin kültüründe kullanılan asılı sütun tekniği. (A) İki cam parçası, steril Vazelin ile 35 mm'lik tabakların altına yapıştırılır. (B) Hücre süspansiyonu, kabın ortasında nazikçe kaplama yapılır ve 45 dakika boyunca tabağa bağlanmasına izin verilir. (C) Kültür ortamı değiştirildikten sonra, steril bir kapak cam parçacıklarının üzerine dikkatlice yerleştirilir, hücre süspansiyonu kaplanır ve yerinde tutulur. (D) Petri kabı sonunda kapağından kapanır ve bir Parafilm şeridi ile kapatılır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
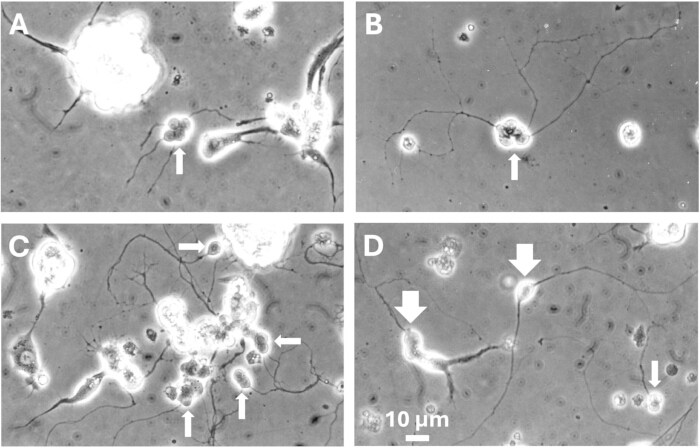
Şekil 3: M. brassicae antennae'den genç kültürlerin görünümleri. (A) 1 gün sonra nöritler uzamaya başlar. (B) 2 gün sonra nöritler daha uzanmış görünür. (C,D) 5 gün sonra, nörit ağı daha yoğun hale gelir. ORN'ler (beyaz oklar) morfolojileriyle kolayca ayırt edilebilir. Ya tek başına ya da küçük kümeler halinde bulunurlar. (C)'de görülen büyük hücre kümeleri, muhtemelen ayrışmamış anten eksplantlarıdır. Nöronlar içerebilirler, bu da onlardan çıkan nöritlerle kanıtlanır. Küçük nöronlar küçük oklarla (A-D) ve 2 büyük nöron büyük oklarla (D) gösterilir. Ölçek (10 μm) A'dan D'ye kadar aynıdır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
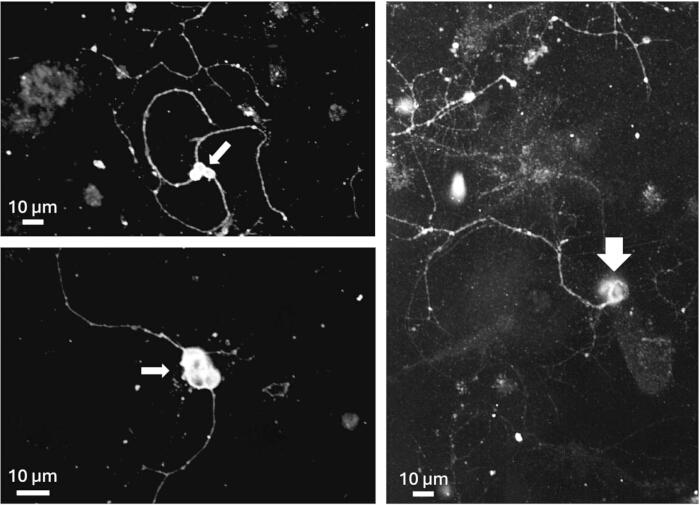
Şekil 4: Küçük (küçük ok) ve büyük nöronlarla (büyük ok) anti-HRP boyama. Deney 5 günlük kültürler üzerinde gerçekleştirildi. Ölçek çubuğu: 10 μm. Detaylı protokol içinbkz. 13. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
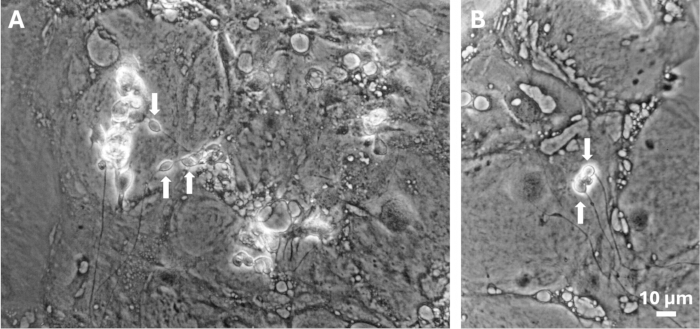
Şekil 5: M. brassicae antenlerinden eski kültürlerin görünümleri. (A,B) 2 haftalık kültür sonrası, çanak yüzeyi yoğun bir nöronal olmayan hücre tabakasıyla kaplanır. Beyaz oklar ORN'leri gösterir. Ölçek (10 μm) A ve B'de aynıdır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
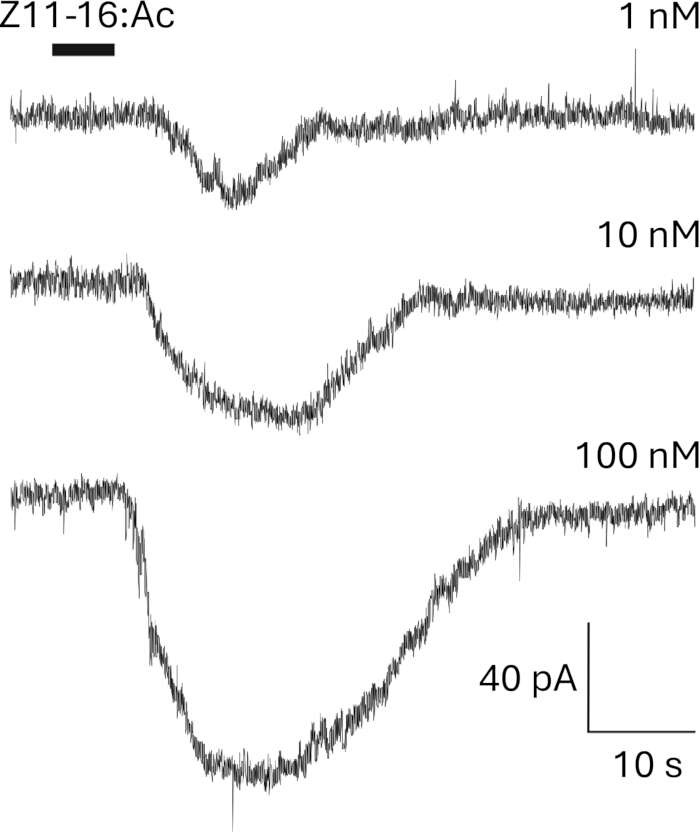
Şekil 6: Kültürdeki nöronlar en az 2 hafta boyunca koku uyaranlarına yanıt verir. M. brassicae'nin ana feromon bileşiği olan Z11-16:Ac'ye verilen tepkiler, yama-kelepçe tekniğinin tüm hücre konfigürasyonunda kaydedilebilir. Z11-16:Ac, nihai konsantrasyon %0,1'i geçmeden dimetil sülfüsit (DMSO) içinde çözünmüş hale getirilmiştir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Tartışma
Protokolün temel adımları şunlardır: (i) Pupaların doğru gelişim aşamasında disseksiye. Pupalar çok genç olduğunda çok az anten dokusu olur ve gevşek olup çok hızlı dağılır ve toplanması çok zordur. Pupalar çok yaşlı olduğunda, anten diseksiyonları çok daha kolaydır, ancak ORN'ler in vitro hayatta kalmaz. ORN'ların birincil kültürlerini hazırladığımız 3 farklı türde, pupa diseksiyonunun optimal aşamasının sadece yarım gün sürdüğünü, pupalar 20 °C'de tutulduğunda ise 2,5-3 gün arasında olduğunu deneysel olarak belirledik. (ii) Grace ve Leibovitz'in L-15 ortamlarının karıştırılması. Grace'in ortamı genellikle böcek hücresi büyümesini desteklemek için kullanılırken, Leibovitz'in L-15 ortamı nöron büyümesini destekler. (iii) Hücreleri kaplama yaparken FBS çıkarılır. Ortamın FBS takviyesi gerekirse, hücre süspansiyonu olan Petri kaplarının tohumlanmasını sağlayan ortamın FBS içermesi gerekir; çünkü bu madde hücre tutunmasını ve dolayısıyla hücrenin hayatta kalmasını engeller. (iv) Yüksek yoğunlukta anten hücrelerinin kültürlenmesi. Bu, ORN'lerin hayatta kalması için kritik öneme sahiptir. (v) Asma sütun tekniği kullanılarak. Daha iyi hücre büyümesini destekler ve kültürlerin ömrünü önemli ölçüde uzatır.
Protokolteki olası bir sorun çözme sorunu, papain ile kuluçka süresinin (10-15 dakika) papain partisine ve 100 μL papain aliquotlarının hazırlanmasından bu yana geçen süreye göre ayarlanması gerektiğidir; çünkü papain -80 °C'de saklandığında bile yavaş yavaş aktivite kaybeder. Papain kuluçka sırasında antenlerin görünümü belirgin şekilde değişmediği için, kuluçka süresi görsel incelemeyle değerlendirilemez.
Temel soru, ORN'lerin in vitro farklılaştırılmasıyla ilgilidir. Tarif edilen protokolle ORN'ler 3-5 hafta hayatta kalabilir. Antenler yetişkin çıkışından yaklaşık 10 gün önce toplandığı ve ORN'lerin çıktıktan 1-2 gün önce tam işlevsel hale geldiği göz önüne alındığında — EAG ve tek sensillum kayıtlarıyla (kişisel gözlem) ölçüldüğüne göre — bu hayatta kalma süresi teorik olarak in vitro farklılaşması için yeterli zaman sağlar. ORN'lerin 8,9,10,14,22,23,24,25,26 numaralı iyon kanallarının büyük çeşitliliğini ifade ettiği bulunmuştur. Koklama uyarılarına doza bağlı bir şekilde yanıt verirler (Şekil 6), bu da en azından normal diferensiya süreçlerini in vitro takip ettiklerini gösterir.
Böcek ORN'leri, sensiller bölmeyi sınırlayan ve ORN dendritlerinin yıkandığı sensillar lenfin iyonik ve protein bileşimini kontrol eden üç yardımcı hücre27 tarafından çevrilmiştir. Bu yardımcı hücreler özellikle koku bağlama proteinlerini (OBP'ler) sentezler. Önceki bir çalışmada, 3-4 haftalık kültürlerde yüksek bir OBP ekspresyonu gözlemlemiştik; bu da yardımcı hücrelerin in vitro13 farklılaştığını gösteriyor. Kültürün bir sınırlaması, kültürlenen ORN'lerin dendritinin, hemolimf28,29'dan daha yüksek K+ konsantrasyonu ve daha düşük Na+ konsantrasyonuna sahip sensiller lenfte olmamasıdır ve bu da bu iki bölme arasında transepitelyalpotansiyel yaratır. Buna karşılık, hücre kültürü elektrofizyolojik karakterizasyon için yardımcı hücrelere erişim sağlar; bildiğimiz kadarıyla bu yaklaşım daha önce uygulanmamıştır.
İlginç bir şekilde, S. littoralis üzerinde yapılan ön testler, protokolün güve hortum hücrelerinin yetiştirilmesi için de uygun olduğunu göstermektedir. Benzer şekilli nöronlar da gözlemlendi; bunlar muhtemelen lezzet alıcı nöronlar olabilir, ancak az sayıda olabilmektedir.
Birincil kültürler, yama-kelepçe kaydı için böcek ORN'lerine kolay erişim sağlar. Ana dezavantaj ise çifttir: hücreler yüksek yoğunlukta kültürlenmelidir, yani birçok anten disseksiye edilmelidir; Bunlar birincil kültürlerdir, yani yeni kültürler düzenli olarak hazırlanmalıdır. Ancak buna değer, çünkü küçük boyutlarına rağmen, bu tür nöronları yamak nispeten kolaydır, yetki kültürü iyi kalitede ise.
Açıklamalar
Yazarların açıklayacak hiçbir şeyi yok.
Teşekkürler
Yazarlar, MRRL-CH1 hücre hattını bağışladığı için Monika Stengl'e teşekkür etmek isterler.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 10 mL şırıngalar | Avantor | Yok | |
| 2.5 mL şırıngalar | Avantor | Yok | |
| 21 mm x 26 mm kaplama kaydırmaları | Avantor | WVR - 631-1335 | |
| 76 mm x 26 mm cam sürgüler | Avantor | WVR - 631-9460 | Kalınlık: 1 mm ve artım; 0,05 mm |
| Acrodisc Supor PF, 0.8/0.2 μ m, 25 mm | Avantor | WVR - 514-4102 | Düşük bağlayıcı şırınga filtreleri |
| Otoklav | Belirli bir marka yok | Yok | |
| Bunsen burner | Belirli bir marka yok | Yok | Pedal ile çalıştırılabilen olmalı |
| Corning Falcon Easy-Grip doku kültürü tabakları 35 mm x 10 mm. Corning 353001 | Avantor | WVR - 734-0005 | Hücrelerin kültürü için steril Petri kapları |
| D-Mannitol | Sigma-Aldrich | M9546 | Oda sıcaklığında sakla |
| Dumont #5 Pensetler | Yok | ||
| EGTA | Sigma-Aldrich | E4378 | Oda sıcaklığında sakla |
| Falcon: 50 mL, 25 cm², tıxac, doku kültür işlenmiş | Avantor | WVR - 734-0009 | Hücre kültürü termosları |
| Fetal Sığır Serumu | ThermoFisher Scientific | A3160801 | -20 derece ve derecede depolayın; C |
| Grace'in böcek ortamı, laktalbumin hidrolizatı ve yeastolate (1x)-Gibco ile takviye edilmiştir | ThermoFisher Scientific | 11605045 | Grace's Insect medium takviyesi var. 5 derece ve derecede depola; C |
| KALSIYUM ve magnezyum-Gibco olmadan HBSS | ThermoFisher Scientific | 14170138 | Hanks'in Dengeli Tuz Çözeltisi (HBSS). 5 derece ve derecede depola; C |
| Bireysel Sarılmış Serolojik Piputlar, Falcon | Avantor | WVR - 734-0352 | Steril tek kullanımlık 10 mL pipetler |
| Bireysel Sarılmış Serolojik Piputlar, Falcon | Avantor | WVR - 734-0343 | Steril tek kullanımlık 25 mL pipetler |
| L15 orta - Gibco | ThermoFisher Scientific | 11415056 | Leibovitz'in L-15 orta motoru. 5 derece ve derecede depola; C |
| Laminar doku kültürü başlığı | Belirli bir marka yok | Yok | |
| N-Feniltiorea | Sigma-Aldrich | P7629 | Oda sıcaklığında sakla |
| Papain | Sigma-Aldrich | P5306 | Liyofilize toz, aseptik doldurulmuş. Alikotları -80 derece ve derecede depolayın; C |
| Parafilm | Sigma-Aldrich | P7793 | |
| Pasteur pipetleri tıkanmış pamuk yunu ile - 150 mm | Belirli bir marka yok | Olduğu gibi (pamuk tıpsa ile) otoklav yapıp kaputun altında bir sterilizasyon kutusunda saklamak | |
| Penisillin-streptomisin | Sigma-Aldrich | P4333 | Penisillin-streptomisin: 5000 UI/ml + 5000 ve mikro; g/ml. -20 derecesinde mağaza edin; C in 1 mL sterile aliquots |
| pH ölçer | Belirli bir marka yok | ||
| Pipet kontrolörü | Avantor | WVR - 612-7179 | Ucuz bir alternatif ise manuel pipet ve nbsp; kontrolörler (örneğin Pipet Pompası veya Bel-Art Pipet Pompaları) |
| Soğutmalı kuluçka makinesi | PHC Avrupa | Model MIR-154-PE | CO2 konsantrasyon ayarlama sistemi Böcek kültürü ortamının pH seviyesinin düzenlenmesi için gereksizdir |
| Stereomikroskop | Belirli bir marka yok | 10x-64x büyütme & nbsp; soğuk ışık kaynağı ve esnek ışık kılavuzları | |
| Pupaların disseksiyası için steril Petri kapları | Avantor | WVR - 391-0868 | Herhangi bir steril tabak kullanılabilir |
| Vidalı kaplı sterilin kaplar, 30 mL | Avantor | WVR - 215-0321 | 30 mL steril tüpler |
| Vidalı kapaklı sterilin kaplar, 7 mL | Avantor | WVR - 215-0328 | 7 mL steril tüpler |
| Vazelin | Sigma-Aldrich | Oda sıcaklığında aseptik olarak saklanın; Vazelin |
Kaynaklar
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).