Bu protokol, kararlı tek kanal kayıtları gerçekleştirmek için entegre amplifikasyona sahip minyatürleştirilmiş bir Montal–Mueller düzlemsel lipid çift katman sisteminin kullanımını açıklamaktadır. Yöntem, sistem performansını doğrulamak amacıyla saflaştırılmış sentetik bir K2P kanalının yeniden konstitüe edilmesiyle gösterilmiştir.
Yöntem makalesi
Sentetik bir K2P Kanalının Kaydı için Minyatürize Edilmiş Montal–Mueller Planar Lipid Çift Tabakası Sistemi Kullanılarak Tek Kanallı Elektrofizyoloji
Bu makalede
Özet
Özet
İyon kanallarının düzlemsel lipid çift tabakalara fonksiyonel rekonstitüsyonu, kanal aktivitesinin tek molekül düzeyinde incelenmesi için bir strateji sağlar. Ancak, geleneksel Montal–Mueller çift tabaka sistemleri genellikle hantal deneysel düzenekler, manuel hazne kurulumu ve nispeten büyük kayıt hacimleri gerektirir; bu durum reaktif tüketimini artırır ve uzatılmış kablolama ile harici kafa katları nedeniyle ek elektriksel gürültü kaynaklarına yol açabilir. Burada, azaltılmış reaktif tüketimi ve basitleştirilmiş operasyon ile stabil tek kanal kayıtlarına olanak tanıyan, kompakt bir amplifikatör ile entegre edilmiş minyatürize, kullanıma hazır bir çift tabaka platformu (BLMchipMM) sunuyoruz. Bu protokol, tek kanal elektrofizyoloji ölçümleri gerçekleştirmek için bu sistemin kullanımını açıklamaktadır. Bu sistemi kullanarak, sentetik bir K2P kanalını (ancTREK1) rekonstitüe ettik ve bunu rekonstitüsyon ile tek kanal kaydını doğrulamak için bir prensip kanıtlama test proteini olarak kullandık. Tek kanal kayıtları, Mg2+-içermeyen simetrik K+ çözeltilerinde, TREK1 kanalları için rapor edilenlerle tutarlı iletkenlik değerlerine sahip bir akım-gerilim ilişkisi göstermektedir. Bu K2P-benzeri kanalın başarılı rekonstitüsyonu, sistemin yapay membranlarda tek kanal analizi için faydasını kanıtlamaktadır.
Giriş
Siyah lipid membranlar (BLM'ler) olarak da bilinen yapay lipid çift katmanlı membranlara iyon kanallarının yeniden konfigüre edilmesi, iyon kanallarının tek molekül düzeyinde elektrofizyolojik karakterizasyonunu gerçekleştirmek için kullanılan yerleşik tekniklerden biridir1. BLM'lerin avantajları, yapılarından kaynaklanmaktadır. Nitekim, polar olmayan bir yüzeydeki bir gözenek içerisinde, iki sıvı çözeltiyi birbirinden ayıran düzlemsel bir lipid çift katmanı (PLB) oluşturulur. Böylece, biyolojik bir membranı taklit ederek, membran lipid kompozisyonu ve elektrolit veya kimyasal bileşik konsantrasyonları dahil olmak üzere yüksek derecede kontrollü koşullar altında iyon kanalı aktivitesinin kaydedilmesine olanak tanırken, her iki taraftan da erişilebilir kalır. Bu erişilebilirlik, iyon kanallarının örneğin miseller bir çözeltiden veya lipozom destekli füzyon yoluyla doğrudan yerleştirilmesine de izin verir2,3.
Tanımlanan ilk yapay membran sistemi, uçucu olmayan bir organik çözücü içinde çözünmüş bir lipid damlasının bir fırça yardımıyla küçük bir açıklığa uygulandığı boyama tekniği4 kullanılarak oluşturulmuştur. Açıklığın her iki yanına sulu bir çözeltinin eklenmesi, lipid çift tabakasının kendiliğinden oluşmasını sağlar. Ancak, bu yöntemin önemli bir dezavantajı, membranın özelliklerini etkileyebilecek solvent kalıntılarının kalmasıdır. Lipid çift tabakaları içindeki kalıntı organik solvent miktarını azaltmak için, "solventsiz" BLM'lerin oluşumuna olanak tanıyan katlama yöntemi5 geliştirilmiştir. Bu yaklaşımda, uçucu bir solvent içindeki lipid çözeltisi, iki monolayer oluşturmak üzere su yüzeyine yayılır ve sulu fazın seviyesi açıklığın üzerine kademeli olarak yükseltilerek, bu lipid monolayerlerin açıklık üzerinde katlanarak bir çift tabaka oluşturması sağlanır. Ancak, elde edilen BLM solventsiz olarak tanımlansa da, başarılı çift tabaka oluşumu için açıklığın ince bir uçucu olmayan solvent tabakasıyla ön işlemden geçirilmesi gerekir. Bu deneyler için gerekli olan temel unsur, küçük bir açıklığa (50–250 µm çapında) sahip lipofilik bir septum ile ayrılmış iki sulu bölmeden (genellikle cis ve trans olarak adlandırılır) oluşan bir kayıt odasıdır (Şekil 1). Her bir bölmeye gümüş/gümüş klorür (Ag/AgCl) elektrotlar yerleştirilir. Elektrolit çözeltisine daldırıldıklarında, bu elektrotlar lipid çift tabakası ile kayıt cihazı arasında elektrokimyasal bağlantıyı kurar. Kayıt cihazı, transmembran potansiyelinin hassas kontrolünü ve gömülü por oluşturucu proteinlerden geçen iyonik akımların eş zamanlı ölçümünü sağlayan bir voltaj-clamp amplifikatöründen oluşur.
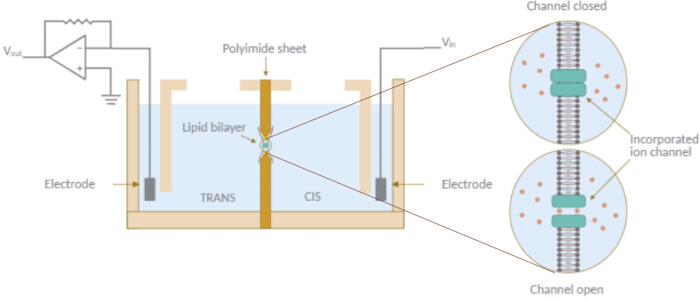
Şekil 1: Planar lipid çift tabaka (PLB) elektrofizyoloji düzeneğinin şeması. PLB deneyleri için gerekli temel bileşenlerin şeması. Kayıt odası, lipid çift tabakasının oluştuğu bir açıklık içeren lipofilik bir septum ile birbirinden ayrılan iki sulu bölmeden (cis ve trans) oluşur. Her bölmedeki elektrolit çözeltiye gümüş/gümüş klorür (Ag/AgCl) elektrotlar daldırılmıştır. Elektrotlardan biri voltaj uyarımları (örneğin sinüs, kare veya üçgen dalga formları) uygular; topraklanan diğer elektrot ise iyonik akımı orantılı bir voltaj sinyaline dönüştüren bir akım-voltaj dönüştürücüye bağlanır. Sinyal yükseltilir, isteğe bağlı olarak filtrelenir, dijitalleştirilir ve gerçek zamanlı izleme ile analiz için kaydedilir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
BLM'leri oluşturmak için başka yöntemler de geliştirilmiştir. Bunlar arasında yaygın bir yaklaşım, bir patch-clamp pipetinin ucunda asılı lipid çift tabakaları oluşturmaktan oluşur. Buna göre, tip-dip yöntemi6, pipet ucunun hava-su arayüzündeki bir lipid tek tabakasına tekrar tekrar daldırılmasıyla ve böylece her geçişte tek bir yaprağın yakalanmasıyla, ~4 µm çapındaki bir cam mikropipet açıklığında asılı, çözücü içermeyen bir lipid çift tabakasının oluşmasını sağlar. Patch-clamp tekniği, lipid çift tabakalarında tek kanal ölçümleri için de kullanılmıştır. Örneğin, punch-out yönteminde7, bir kayıt odasındaki açıklığın üzerine başlangıçta boyanmış geniş bir membranı yamamak için 10 ile 80 µm arasında çapta bir cam pipet kullanılır. Alternatif olarak, lipozom-patch yöntemi, çözücü içermeyen bir BLM8,9 olarak önceden oluşturulmuş nano ile mikro boyutlu bir vezikülün kullanımını içerir. Özellikle, dev unilameller veziküller; hücreye yapışık ve eksize patch modları dahil olmak üzere farklı patch-clamp konfigürasyonları aracılığıyla tek kanal kayıtları için yaygın olarak kullanılmıştır10,11.
Birden fazla çift katmanın paralel ve otomatik olarak oluşturulması için çeşitli platformlar da geliştirilmiştir. Bu yaklaşımlardan biri, sulu damlacıkların bir lipid-solvent karışımına yerleştirildiği damlacık arayüzü çift katman (DIB) tekniğidir12. Bu yöntemde, lipid tek katmanlar damlacıkların etrafında kendiliğinden birleşir ve iki damlacık temas ettiğinde çift katman oluşumu gerçekleşir. Bazı düzeneklerde, membran stabilitesini artırmak için DIB'ler hidrojeller üzerinde oluşturulabilir13. Bir cam pipet ucunda DIB oluşumuna dayanan alternatif bir yaklaşım ise, iki mikropipet kullanılarak bir yağ fazına sulu kabarcıkların verildiği temas kabarcığı çift katman (CBB) yöntemidir14. DIB yaklaşımında olduğu gibi, lipid kaplı iki kabarcık temas ettirildiğinde kendiliğinden bir lipid çift katman oluşur. Bir diğer platform ise, ızgara deseninde düzenlenmiş, iyi tanımlanmış mikro ile nano ölçekli gözenek dizilerinden oluşan dizili BLM sistemleridir. Bu sistemlerde, askıda lipid çift katmanlar; boyama veya katlama teknikleri ya da lipozom vezikül rüptürü kullanılarak manuel olarak15,16,17 veya mikroakışkan kanal yapılarıyla birleştirildiğinde lipid ve tampon çözeltilerin ardışık enjeksiyonu yoluyla otomatik olarak oluşturulabilir18,19.
Çözücüsüz BLM'ler oluşturmak için birçok yöntem geliştirilmiş olsa da, bu çalışmada, yapay bir lipid çift katmanına gömülmüş membran proteinlerinin tek kanallı davranışını incelemek için minyatürize edilmiş ve entegre bir platformda uygulanan katlama yöntemine odaklanıyoruz. Deneyler, iki bileşenden oluşan Elements düzeneği kullanılarak gerçekleştirilmiştir: Elements Nanopore Reader (eNPR amplifikatörü) ve BLMchipMM (Şekil 2A ve Şekil 2B). İlk cihaz, eksiksiz ve bağımsız bir ünite oluşturarak çalışma alanını sadeleştiren ve ek harici cihazlara olan ihtiyacı ortadan kaldıran kompakt, düşük gürültülü bir voltaj-clamp amplifikatörüdür. BLMchipMM, Montal–Mueller tekniği için tasarlanmış, önceden monte edilmiş ve minyatürize edilmiş bir sistem olup deneysel arayüz görevi görür. Sistem, amplifikatöre doğrudan bağlantı için elektrot görevi gören Ag/AgCl telleri yerleştirmek üzere tasarlanmış iki soketi içeren bir baskılı devre kartı (PCB) ile entegre, şeffaf bir polimetil metakrilat (PMMA) kayıt odasından oluşur. Odanın çekirdek yapısı, iki şeffaf PMMA bileşeni arasında mühürlenmiş bir poliimid septumdan meydana gelir. Septum, çift katman oluşumunu kolaylaştırmak için kalınlığın 25 µm'ye düşürüldüğü küçük bir merkezi bölge (3,78 mm2) hariç 50 µm kalınlığındadır. Bu daha ince bölgenin merkezinde, lazerle delme yoluyla konik bir açıklık oluşturulmuştur ve bu durum lipid çift katmanının mekanik stabilitesini artırır20,21. Membran kapasitansının ayarlanmasına olanak tanıyan dört farklı açıklık çapı (50, 75, 100 ve 140 µm) mevcuttur (Tablo 1). Her bir PMMA bileşeni, elektrolit çözeltisini tutmak için poliimid septumun her iki yanında iki akışkan bölme oluşturan 110 µL hacminde C şeklinde bir boşluğa sahiptir. Her bir PMMA bloğunun zıt taraflarına iki eğimli akışkan kanal delinmiştir: kanallardan biri Ag/AgCl elektrodunu yerleştirmek için kullanılırken, diğeri pipetleme yoluyla rezervuardaki tampon seviyesinin manuel olarak ayarlanmasına olanak tanır.
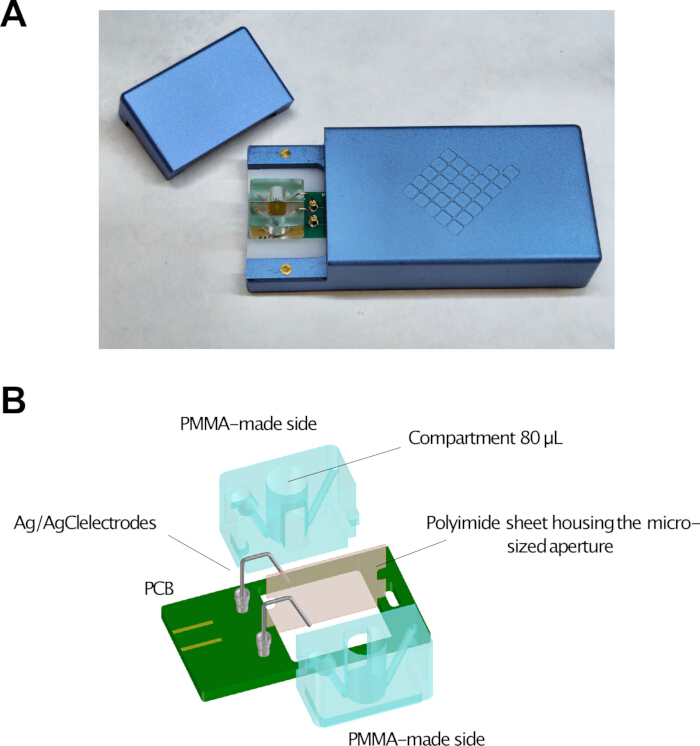
Şekil 2: Entegre Elements Nanopore Reader ve BLMchipMM sistemi. (A) BLMchipMM'nin Elements Nanopore Reader (eNPR) amplifikatörünün özel yuvasına yerleştirilmiş halini gösteren fotoğraf. (B) Polimetil metakrilat (PMMA) kayıt odası, mikro boyutlu açıklığı içeren poliimid septum ve Ag/AgCl elektrotlar için soketler ile oda hizalaması için bir yuva içeren baskılı devre kartı (PCB) dahil olmak üzere BLMchipMM bileşenlerinin şematik gösterimi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Delik çapı (µm) | 50 | 75 | 100 | 140 |
| Delik kalınlığı (µm) | 25 | 25 | 25 | 25 |
| Tipik membran kapasitansı (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
Tablo 1: Mevcut BLMchipMM açıklık formatlarının özellikleri. 50, 75, 100 ve 140 µm açıklıklara sahip BLMchipMM cihazları için delik çapı, açıklık bölgesindeki septum kalınlığı ve tipik membran kapasitans değerleri. Membran kapasitans değerleri, 1,2-diphytanoyl-sn-glycero-3-phosphocholine lipidlerinden oluşturulan çift katmanlar için gösterilmiştir.
Laboratuvarlarda kullanılan kayıt odaları genellikle ya el yapımı üniteler ya da ticari olarak mevcut olan cihazlardır. İlk durumda, sistemin inşası çeşitli bileşenlerin birleştirilmesini ve septumdaki açıklığı oluşturmak için güvenilir bir yöntemin geliştirilmesini gerektirir, bu da birçok laboratuvar için erişilebilirliği kısıtlayabilir. Ticari cihazlar kullanıldığında bile, bunlar genellikle her deneyden önce birden fazla bileşenin manuel olarak entegre edilmesini gerektirir. Buna karşılık, BLMchipMM önceden monte edilmiştir ve rutin temizleme prosedürleri için deneyler arasında sökülme gerektirmez. Kullanılan çözücülerin cihaz malzemeleriyle uyumlu olması şartıyla, aynı ünite membran oluşum kalitesinden ödün vermeden yıkanabilir ve birden fazla deney için yeniden kullanılabilir. Bu durum, kullanıcıya bağlı değişkenliği azaltır ve manuel sızdırmazlık elemanlarıyla ilişkili sızıntı riskini minimize eder. Harici, değiştirilebilir ve yenilenebilir gümüş tel elektrotların kullanımı, özellikle elektrot tüketimini hızlandıran deneysel koşullar altında sistemin kullanılabilir ömrünü daha da uzatır.
Dahası, ev yapımı düzenekler genellikle büyük bölme hacimlerine sahiptir ve bu durum deneyler için gereken biyolojik ve kimyasal bileşen miktarını artırır. Buna karşılık, BLMchipMM'nin minyatürizasyonu, deneysel hacimlerin minimize edilmesine olanak tanıyarak reaktiflerin, proteinlerin ve diğer bileşiklerin tüketimini önemli ölçüde azaltır. Bu durum, özellikle ekspresyonu zor veya düşük verimli membran proteinleriyle çalışırken veya test bileşiklerinin sentez maliyetinin yüksek olduğu ve deneylerin toplam maliyetini artırdığı durumlarda oldukça avantajlıdır. Önemli bir nokta olarak BLMchipMM, solventi minimize edilmiş çift katmanların oluşumunu sağlar ve her bir yaprağın farklı lipid türlerinden oluşabildiği asimetrik membran konfigürasyonlarını destekleyerek5,22, membran protein fonksiyonunun kontrollü koşullar altında incelenmesini kolaylaştırır.
Geleneksel olarak akım ölçümleri, genellikle veri toplama için ayrı bir dijitalleştiriciye bağlanmayı ve grafik arayüzler üzerinden kontrol edilmeyi gerektiren, patch-clamp deneyleri için tasarlanmış amplifikatörler kullanılarak gerçekleştirilir. Bu sistemler sadece hantal ve pahalı olmakla kalmaz, aynı zamanda uzman olmayan kullanıcılar için genellikle sezgisel olmayan kurulum prosedürleri içerir. Ek olarak, kayıt odasının boyutu ve standart amplifikatörlerin tasarımı nedeniyle —ki bunlar genellikle baş aşaması girişini elektrostatik parazitlerden korumak için yerleşik bir zırha sahip değildir— harici bir Faraday kafesinin kullanımı sıklıkla gereklidir. Böyle bir kafesin kalitesi ve topraklaması, sistemin gürültü performansını önemli ölçüde etkileyebilir. BLMchipMM, kompakt entegre bir amplifikatör ile kullanıldığında, harici bileşenlere olan ihtiyacı azaltarak bu konfigürasyonu basitleştirir. Sinyal dijitalleştirme işlemleri cihazın içinde gerçekleşir ve sistem gövdesi, ortamdaki elektromanyetik parazitlere karşı duyarlılığı azaltan bir zırhlama sağlar.
Bu platformun uygulanabilirliğini göstermek için, TREK alt ailesinin bilgisayar ortamında türetilmiş atasal bir üyesi olan K2P benzeri kanal ancTREK1 (Ek Şekil 1), başarılı rekonstitüsyonu ve tek kanal kaydını doğrulamak amacıyla test proteini olarak kullanılmıştır. K2P kanalları, dinlenme membran potansiyelini ve hücresel eksitabiliteyi düzenleyen dimerik potasyum sızıntı kanalları oluşturur ve TREK kanalları iyi karakterize edilmiş bir alt familyayı temsil eder.
Protokol
Bu çalışma insan katılımcıları, insan kaynaklı materyalleri veya hayvan denekleri içermemektedir. Bu nedenle, kurumsal ve ulusal kılavuzlar uyarınca etik onay gerekmemiştir.
1. Elektrofizyoloji Düzeneklerini Hazırlayın
- Enstrüman kalibrasyonu
Sistem fabrika ayarlı olduğu için resmi bir kalibrasyon gerekmemekle birlikte, membran oluşumu öncesinde sistemin düzgün çalıştığını doğrulayın.- Açık devre koşulları altında (yani BLMchipMM takılı değilken) giriş direncini ölçün. Ölçülen direnç, amplifikatör giriş bütünlüğünün uygun olduğunu onaylayacak şekilde ≥1 TΩ olmalıdır.
- 1 GΩ'luk bir direnç içeren model hücre kullanarak sistem yanıtını doğrulayın. Ölçülen direnç, entegre direncin toleransıyla tutarlı olarak ±30% dahilinde 1 GΩ olmalıdır.
- Sabit voltajda (0 mV) açık devre koşulları altında bazal gürültüyü ölçün. Düşük gürültülü sistem performansını onaylamak için, 10 kHz örnekleme hızında ve 5 kHz bant genişliğinde RMS gürültüsü ≤300 fA olmalıdır.
- Ag/AgCl elektrotlarını hazırlama
- İlk kullanım için gümüş telleri etanol ve çift distile su ile durulayın.
- Daha önce kullanılmış teller için, tel yüzeyinden eski Ag/AgCl tabakasını, yüzey görünür kalıntısız, temiz bir metalik parlaklığa sahip tekdüze parlak gümüş görünümü alana kadar ekstra ince kumlu zımpara ile temizleyin. Ardından etanol ve çift distile su ile durulayın.
- Gümüş tellerin uç kısımlarını, açık gri renk alana kadar (genellikle 15–30 dk boyunca) %1–5'lik sodyum hipoklorit (NaOCl) içinde bekleterek klorlayın (Şekil 3A). Klorlanmış telleri, renk değişimi, bazal akımda kayma veya her ikisi şeklinde görülen bozulmalar için kullanım sırasında zamanla izleyin.
NOT: Klorlama işlemi yaygın ev tipi çamaşır suyu (%1–5 NaOCl) kullanılarak gerçekleştirilebilir.
DİKKAT: Telleri tüm uzunlukları boyunca klorlamayın. Doğru elektriksel bağlantıyı sağlamak için PCB soketine giren uç kısmını klorlamadan bırakın.
DİKKAT: PCB üzerindeki soketler 0,5 mm çapındaki gümüş teller için tasarlanmıştır. Diğer çaplar uygun şekilde oturmayabilir veya dengesiz bağlantılara yol açabilir.
- BLMchipMM'yi monte etme
- İki gümüş telin klorlanmamış uç kısımlarını PCB soketlerine yerleştirin. Doğru konumlandırmak için gerekirse cımbız kullanın (Şekil 3B).
- Tellerin klorlanmış uçlarını PMMA bileşenine delinmiş olan akış kanallarına yerleştirin (Şekil 3C).
- BLMchipMM'yi nazikçe döndürün ve PMMA kayıt odasının alt dişini ilgili yuvaya oturtarak PCB üzerine monte edin (Şekil 3D).
- Tellerin konumunu kontrol edin ve akış kanallarının sonuna ulaştıklarından emin olun. Gerekiyorsa, uçlar bölmelerin altında görünene kadar telleri nazikçe itin (Şekil 3E).
DİKKAT: Telleri PMMA bileşenine mümkün olduğunca yakın konumlandırın. Aşırı kavisli olmaları amplifikatör kapağına temas etmelerine neden olabilir, bu da kısa devreye ve sinyal doygunluğuna yol açar.
- Lipidleri ve kayıt çözeltisini hazırlama
- Septum açıklığını ön işlemden geçirmek için %100 n-hekzan içinde %1 (v/v) heksadekan çözeltisinden 100 µL hazırlayın. Bu çözeltiyi −20°C'de bir haftaya kadar saklayın.
- 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) lipidlerini, 15 mg/mL nihai konsantrasyona ulaşana kadar %100 n-pentan içinde yeniden süspanse edin. Bu çözeltiyi −20°C'de 24 saate kadar saklayın.
- 3 mL 1 M KCl stok çözeltisini, 150 µL 1 M 4-(2-hidroksietil)-1-piperazineetansülfonik asit stok çözeltisi (pH değeri bir pH metre kullanılarak KOH ile 7,4'e ayarlanmış) ile karıştırarak elektrolit kayıt çözeltisini oda sıcaklığında (RT; 20°C–25°C) hazırlayın. Nihai hacmi 15 mL'ye tamamlamak için çift distile su ekleyin. Çözeltiyi 4°C'de bir haftaya kadar saklayın (Tablo 2).
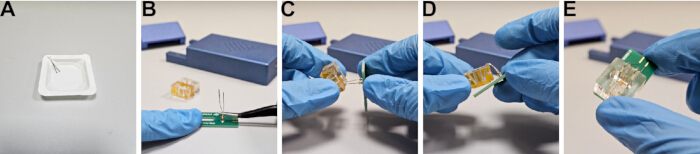
Şekil 3: BLMchipMM cihazının montajı. (A) Ag tellerin çamaşır suyu ile emdirilerek klorlanması. (B) Ag tellerin PCB soketlerine yerleştirilmesi. (C) Ag tellerin mikroakışkan kanallara konumlandırılması. (D) Kayıt odasının PCB üzerine yerleştirilmesi. (E) Akışkan kanallar içindeki elektrotların doğru konumlandırıldığının doğrulanması. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Reaktif | Final konsantrasyon | Hacim |
| Çift distile su | — | 15 mL'ye ekleyin |
| Potasyum klorür (KCl) (1 M) | 200 mM | 3 mL |
| HEPES pH 7,4 (KOH) (1 M) | 10 mM | 150 µL |
Tablo 2: Elektrolit kayıt çözeltisi. Reaktif konsantrasyonları ve hazırlama hacimleri dahil olmak üzere, PLB kayıtları için kullanılan elektrolit çözeltisinin bileşimi. Nihai hacim, çift distile su ile 15 mL'ye ayarlanır. Kayıt çözeltisi, kullanım öncesinde 0.2 µm'lik bir şırınga filtresi kullanılarak filtrelenmelidir.
NOT: Kayıt çözeltisini kullanmadan önce 0,2 µm şırınga filtresiyle süzün. DPhPC lipidleri kuru toz şeklinde veya kloroformda çözülmüş olarak sağlanabilir. Oksidasyonu önlemek için her iki formu da −20°C'de, inert gaz altında, sızdırmaz cam şişelerde saklayın. Kuru tozun açılmadan önce RT'ye ulaşmasını bekleyin. Kuru tozdan taze çözeltiler hazırlayın ve 24 h içinde kullanın. Kloroform stokları kullanılıyorsa, kalıntı kloroform membranı destabilize edebileceği için resüspansiyondan önce solventi nitrojen altında tamamen uçurun.
2. Montal–Mueller yöntemi ile PLB oluşturma
Aşağıdaki adımlar, Montal–Mueller tekniği5 olarak da adlandırılan katlama yöntemini kullanarak yapay membran oluşumunu açıklamaktadır (Şekil 4). Bu yaklaşım, septum açıklığının n-hekzan içinde %1 (v/v) heksadekan içeren ince bir tabaka ile ön işlemden geçirilmesini, hava-su ara yüzeyinde tek katmanlar oluşturmak için bir lipid solüsyonunun çöktürülmesini ve elektrolit solüsyon seviyesi oda bölmelerinde sırasıyla yükseltilirken tek katmanların açıklık üzerinde katlanmasını içerir.
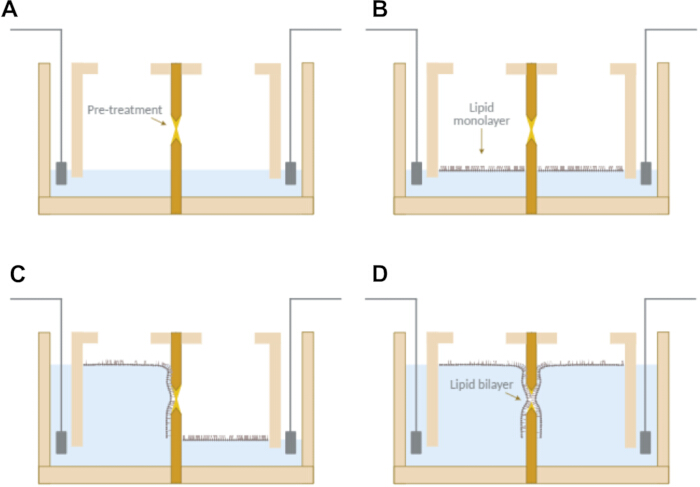
Şekil 4: Montal–Mueller yöntemi kullanılarak PLB'lerin oluşturulması. (A) Açıklığın %1 heksadekan içeren n-hekzan ile ön işlemi ve bölmelerin açıklık seviyesine kadar doldurulması. (B) Hava–su arayüzünde lipid tek katmanların oluşumu. (C ve D) Her bir bölmedeki tampon seviyesinin sırayla yükseltilmesi, tek katmanların katlanmasına ve açıklık boyunca çözücüden arındırılmış bir lipid çift katmanın oluşmasına yol açar. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
- Membranın oluşturulması
- Septum açıklığını, bir pipet ucu kullanarak n-hekzan içindeki %1 (v/v) heksadekan çözeltisi ile ön işlemden geçirin. Her bir tarafa yaklaşık 2 µL uygulayın (Şekil 4A).
- Çözücünün 23°C–25°C sıcaklık ve %45–%50 bağıl nemde 5 dk boyunca buharlaşmasını bekleyin.
- Montajı tamamlanmış BLMchipMM'yi amplifikatöre yerleştirin.
- Amplifikatörü bir USB kablosu aracılığıyla bilgisayara bağlayın ve veri toplama yazılımını açın.
- Akım aralığını 2 nA olarak ayarlayın ve membran kapasitansını ve direncini izlemek için RC kestirim aracını etkinleştirin.
NOT: RC kestirim ayarları varsayılan olarak yapılandırılmıştır ancak gerekirse ayarlanabilir. - Her bir bölmeyi, açıklığın alt kenarına kadar 30 ± 2 µL kayıt çözeltisi ile doldurun (Şekil 4A).
DİKKAT: Kayıt çözeltisinin açıklığı çevreleyen bölgeyi ıslatmasına izin vermeyin. - Her bir bölmedeki sulu fazın yüzeyine damla damla 2.5 ± 0.1 µL lipid çözeltisi yayın (Şekil 4B).
- Çözücünün 2 dk boyunca buharlaşmasını bekleyin.
- Bir bölmenin altına, yaklaşık 90° açıyla bir pipet ucu yerleştirin ve 80 ± 2 µL kayıt çözeltisi ekleyin. Aynı işlemi ikinci bölme için tekrarlayın (Şekil 4C ve Şekil 4D).
NOT: Çözücü buharlaşma süreleri 23°C–25°C sıcaklık, durgun hava ve %45–%50 bağıl nem koşullarını ifade eder. - Faraday kafesinin kapağını kapatın ve akım sinyalini izleyin. 200 GΩ üzerindeki membran direnç değerleri, başarılı bir çift tabaka oluşumunu ve iyi membran bütünlüğünü gösterir.
NOT: Başarılı membran oluşumu, genliği membran kapasitansı ile orantılı olan ve sıfır civarında dalgalanan kare dalga akım sinyali ile belirtilir (Şekil 5A).
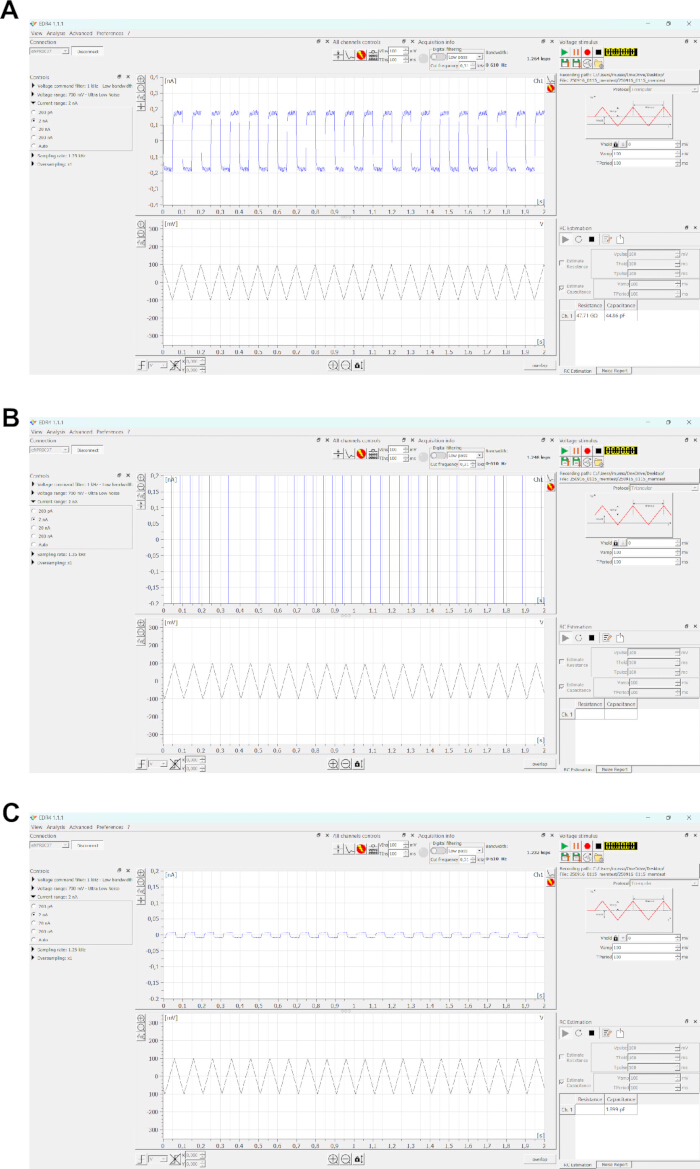
Şekil 5: Veri toplama yazılımı arayüzü kullanılarak membran oluşumunun izlenmesi. (A) Başarılı membran oluşumunu gösteren temsili iz. Üçgen bir voltaj dalga formu (100 mV peak-to-peak, 10 Hz), membran kapasitansı ile orantılı (~45 pF) kare dalga şeklinde bir kapasitif akım üretir. (B) Akım sinyalinin doygunluğu ile karakterize edilen, membran oluşumunun gerçekleşmediğini belirten temsili iz. (C) Açıklık açık olduğu durumlar gibi, çift katman oluşmadığında ortaya çıkan parazit kapasiteye karşılık gelen kapasitif sinyal. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
NOT: Akım aralığı sınırları arasında geçiş yapan bir sinyal, membran arızasına işaret eder (Şekil 5B).
NOT: RMS gürültüsü membran kapasitansı ile ve dolayısıyla açıklık boyutuyla birlikte artar. Sabit voltaj koşulları (0 mV) altında, 5 kHz örnekleme hızı ve 2.5 kHz bant genişliğinde ölçülen tipik gürültü aralıkları şunlardır: 0.48–2.00 pA (50 µm); 0.74–2.62 pA (75 µm); 1.00–3.52 pA (100 µm) ve 1.59–5.27 pA (140 µm).
NOT: İlk denemeler başarısız olursa, bir bölmedeki tampon seviyesini düşürmek ve yükseltmek membran oluşumunu teşvik edebilir.
NOT: Gerektiğinde, çift katman oluşumunu kolaylaştırmak için bir pipet ucu kullanarak açıklığın üzerine yaklaşık 5 s boyunca bir hava kabarcığı uygulayın.
NOT: Tampon seviyesini açıklığın altına düşürmek veya bir hava kabarcığı uygulamak, sapan kapasansa karşılık gelen bir sinyal üretebilir (Şekil 5C). Çıktı Şekil 5B'ye benziyorsa, ön işlem etkisiz kalmış olabilir. Ön işlem solüsyonunu ve lipidleri yeniden uygulayın veya cihazı temizleyip prosedürü tekrarlayın.
DİKKAT: Voltaj ofset kompanzasyonunu yalnızca membran yokken gerçekleştirin. Eğer bir membran mevcutsa, kompanzasyon yapmadan önce ZAP fonksiyonunu kullanarak membranı yırtın.
NOT: Deneyler standart bir laboratuvar tezgahında gerçekleştirilebilir; ancak gerekirse titreşim önleyici bir masa kullanılabilir.
3. BLMchipMM'nin Temizlenmesi
- Kayıt haznesini PCB'den çıkarın.
- Her iki bölmeyi ve akış kanallarını %100 izopropil alkol (IPA) ile yıkayın.
DİKKAT: IPA'ya maruz kalma süresini 1 dk'dan fazla tutmayın.
DİKKAT: Aseton veya %100 etanol kullanmayın; çünkü bu çözücüler haznenin sızdırmazlık malzemesine zarar verebilir.
NOT: Kullanmadan önce ek çözücülerin PMMA ile uyumluluğunu doğrulayın. - Çift distile su ile iyice durulayın.
- Gözle görülür su damlacıkları kalmayana kadar, kayıt haznesini hafif bir basınçlı hava akımı kullanarak tamamen kurutun.
NOT: Kalıntı yağlı filmlerin bulunmadığından emin olmak için hazneyi ışıklı bir büyüteç altında inceleyin. Gerekirse temizleme ve kurutma prosedürünü tekrarlayın.
NOT: Yeni bir deneye başlamadan önce haznenin tamamen temiz ve kuru olduğundan emin olun.
4. Sentetik İyon Kanalının (ancTREK1) Ekspresyonu ve Saflaştırılması
- Ekspresyon konstrüktünün hazırlanması
Aşağıdaki adımlar klonlama stratejilerini, Freestyle-293F hücrelerinde heterolog ekspresyonu ve ancTREK1 proteininin saflaştırılmasını açıklamaktadır.
PCR amplifikasyonu, restriksiyon enzimi sindirimi, ligasyon ve kimyasal olarak kompetan Escherichia coli hücrelerine transformasyon kullanarak ekspresyon vektörünü oluşturun23,24. Floresan tabanlı deteksiyona25,26 ve nikel-nitrilotriasetik asit (Ni2⁺-NTA reçinesi)27,28,29 ardından anti-GFP nanobody reçinesi30,31,32 kullanan iki aşamalı afinite saflaştırmasına olanak tanıyan, C-terminal GFP etiketi ve His₈ etiketi içeren bir memeli vektörü kullanarak ancTREK1 sekansını (Ek Şekil 1) eksprese edin. - ancTREK1 DNA'sının PCR ile amplifikasyonu
- Steril çift distile su kullanarak PCR primerlerini ve DNA kalıbını sırasıyla 10 µM ve ~20 ng/µL son konsantrasyonlarına seyreltin.
- Tüm reaktifleri buz üzerinde çözdürün.
- 10 µL 5× tampon, her bir 10 µM primerden 2,5 µL, 2 µL DNA kalıbı, 1 µL 10 mM dNTP, 0,5 µL yüksek sadakatli (high-fidelity) DNA polimeraz ve hacmi tamamlamak için steril çift distile su içeren 50 µL'lik bir PCR reaksiyonu hazırlayın (Tablo 3). Nazikçe karıştırın ve kısa süreli santrifüjleyin.
- PCR'ı şu koşullarda gerçekleştirin: 98°C'de 3 dk başlangıç denatürasyonu; 98°C'de 30 sn, 68°C'de 30 sn ve 72°C'de 30 sn'den oluşan 30 döngü; 72°C'de 3 dk final uzama (Tablo 4).
- PCR ürününü 1× TAE tamponunda %1 (a/h) agaroza jelde 60 V'ta 90 dk boyunca yürütün ve doğru bandı kesin.
NOT: PCR ürünlerini jel ekstraksiyon yöntemiyle saflaştırın, DNA konsantrasyonunu 260 nm'de ölçün ve gerekirse saflaştırılmış PCR ürünlerini −20°C'de saklayın.
- Restriksiyon sindiriminin gerçekleştirilmesi
- Ayrı tüplerde 2 µg PCR ürünü ve 2 µg plazmit DNA içeren sindirim reaksiyonları hazırlayın. 5 µL 10× tampon, 0,5 µL EcoRI ve 0,5 µL NotI restriksiyon enzimleri ekleyin ve çift distile su ile 50 µL'ye tamamlayın (Tablo 5).
- Nazikçe karıştırın ve 37°C'de 3 saat inkübe edin.
- Enzimleri 65°C'de 20 dk boyunca ısı ile inaktive edin.
- Vektör sindirimine 1 µL alkalin fosfataz ekleyin ve 37°C'de 1 saat inkübe edin.
- Sindirilmiş ürünleri %1'lik agaroz jelde yürütün ve istenen bantları ekstrakte edin.
NOT: DNA fragmanlarını uygun saflaştırma yöntemleri kullanarak saflaştırın ve gerekirse saflaştırılmış DNA'yı −20°C'de saklayın.
- Ligasyon ve transformasyonun gerçekleştirilmesi
- Vektör ve insert (3:1 molar oran), 2 µL 10× ligaz tamponu ve 1 µL ligaz enzimi içeren 20 µL'lik bir ligasyon reaksiyonu hazırlayın (Tablo 6).
- Oda sıcaklığında (RT) 1 saat inkübe edin.
- Kimyasal olarak kompetan E. coli hücrelerini buz üzerinde çözdürün.
- 50 µL hücreye 5 µL ligasyon karışımı ekleyin ve buz üzerinde 20 dk inkübe edin.
- 42°C'de 1 dk ısı şoku uygulayın, ardından 2 dk boyunca tekrar buza alın.
- 450 µL LB besiyeri ekleyin ve 37°C'de çalkalamalı olarak 1 saat inkübe edin.
- 3.000 × g'de 1 dk santrifüjleyin ve peleti 50 µL içinde resüspande edin.
- Selektif agara ekim yapın ve 37°C'de gece boyunca inkübe edin.
NOT: Başarılı klonlamayı sekanslama ile doğrulayın.
- HEK293F hücrelerinin transfeksiyonu
- Serumsuz süspansiyon besiyerinde 0,5 × 10⁶ hücre/mL yoğunluğunda 250 mL 293F hücresini ekin ve %6 CO₂ ile 37°C'de inkübe edin.
- 3 mL düşük serumlu besiyerinde son hacimde 250 µg DNA hazırlayın.
- Su içinde 1 mg/mL konsantrasyonda 750 µg polietilenimin (PEI) hazırlayın, pH'ı NaOH ile 6,9–7,1'e ayarlayın, çözeltiyi steril filtreleyin ve düşük serumlu besiyeri ile son hacmi 3 mL'ye tamamlayın.
- DNA ve PEI çözeltilerini birleştirin, nazikçe karıştırın ve oda sıcaklığında (RT) 10 dk inkübe edin.
- Karışımı hücrelere damla damla ekleyin.
- 4 saat sonra 10 mM son konsantrasyona ulaşacak şekilde sodyum bütirat ekleyin.
- Hücreleri 48 saat sonra 500 × g'de 15 dk santrifüjleyerek hasat edin.
- Hücre peletlerini −80°C'de saklayın.
- Membran proteinlerinin solubilizasyonu
- 100 mL HEK293 kültüründen elde edilen hücre peletlerini buz üzerinde çözdürün.
- Hücre peletini 1:10 (a/h) oranında lizis tamponunda resüspande edin (Tablo 7).
Deterjanı %1 n-dodesil-β-D-maltosid (DDM) ve %0,1 kolesteril hemisüksinat (CHS) son konsantrasyonlarına ulaşacak şekilde ekleyin. - 4°C'de rotasyonla 2 saat inkübe edin.
- 4°C'de 100.000 × g'de 1 saat santrifüjleyin.
- Süpernatantı toplayın.
DİKKAT: Tüm adımları önceden soğutulmuş tamponlar kullanarak 4°C'de gerçekleştirin.
- IMAC saflaştırmasının gerçekleştirilmesi
- 500 µL Ni2⁺-NTA reçinesini bir gravite kolonuna yerleştirin.
- Reçineyi iki kolon hacmi (CV) dengeleme tamponu ile dengeleyin (Tablo 8).
- Numuneyi yükleyin ve 10 rpm'de hafif karıştırarak 4°C'de 3 saat inkübe edin.
- Kolonu dikey konuma getirin ve akış ürününü (flowthrough) gravite akışı ile toplayın.
- Reçineyi 30 mM imidazol içeren 10 CV yıkama tamponu ile yıkayın.
- Proteini 300 mM imidazol içeren 10 CV elüsyon tamponu ile elüe edin.
NOT: Fraksiyonları SDS-PAGE ile analiz edin (Şekil 6). Analiz için akış ürünü ve yıkama fraksiyonlarını saklayın. Gerekirse proteini gece boyunca 4°C'de saklayın.
- Anti-GFP saflaştırmasının gerçekleştirilmesi
- 1 mL anti-GFP reçinesini bir gravite kolonuna yerleştirin.
- Reçineyi 2 CV Tampon 1 ile dengeleyin (Tablo 9). IMAC elüatını yükleyin ve 10 rpm'de hafif karıştırarak 4°C'de 3 saat inkübe edin.
- Kolonu dikey konuma getirin ve akış ürününü gravite akışı ile toplayın.
- Reçineyi sırasıyla 10 CV Tampon 1, 10 CV Tampon 2 ve 10 CV Tampon 1 ile yıkayın.
- HRV-3C proteazı, 1:50 proteaz:protein oranında 2 mL Tampon 1 içinde seyreltin.
- HRV-3C proteaz ile desteklenmiş Tampon 1'i reçineye ekleyin, nazikçe karıştırın ve 4°C'de dikey statik konumda gece boyunca inkübe edin.
- Kesilmiş proteini elüsyon fraksiyonunda toplayın.
- Numuneyi, 50 kDa kesme sınırına (cutoff) sahip bir santrifüj konsantratörü kullanarak 3.000 × g ve 4°C'de, yaklaşık 500 µL son hacme ulaşana kadar konsantre edin.
NOT: Fraksiyonları SDS-PAGE ile analiz edin (Şekil 7). Agregasyonu önlemek için konsantrasyon sırasında proteini periyodik olarak resüspande edin. Saflaştırılmış proteini flash dondurma işleminden sonra −80°C'de saklayın. 100 mL kültürden yaklaşık 60 µg protein elde edilebilir.
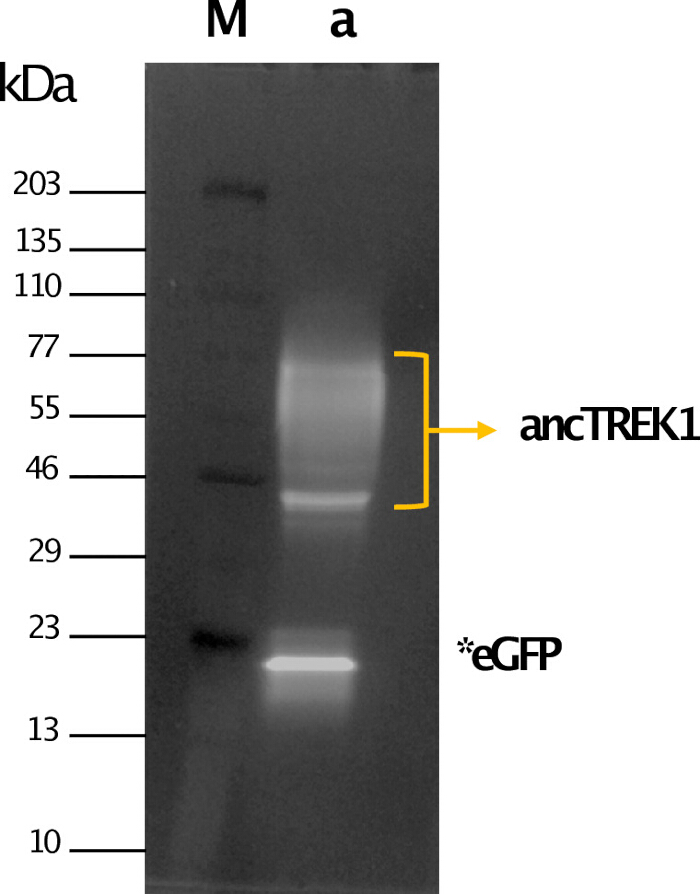
Şekil 6: İmmobilize metal iyon afinite kromatografisi (IMAC) ile ancTREK1 saflaştırması. Floresan deteksiyonlu IMAC elüsyon fraksiyonlarının sodyum dodesil sülfat-poliakrilamid jel elektroforezi (SDS-PAGE) analizi. Şerit M: moleküler ağırlık markörü. Şerit a: yeşil floresan protein (GFP) etiketli ancTREK1'i gösteren IMAC elüsyon fraksiyonu (sarı ok). Otoklevaj sonucu oluşan serbest GFP (*eGFP ile belirtilmiştir). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
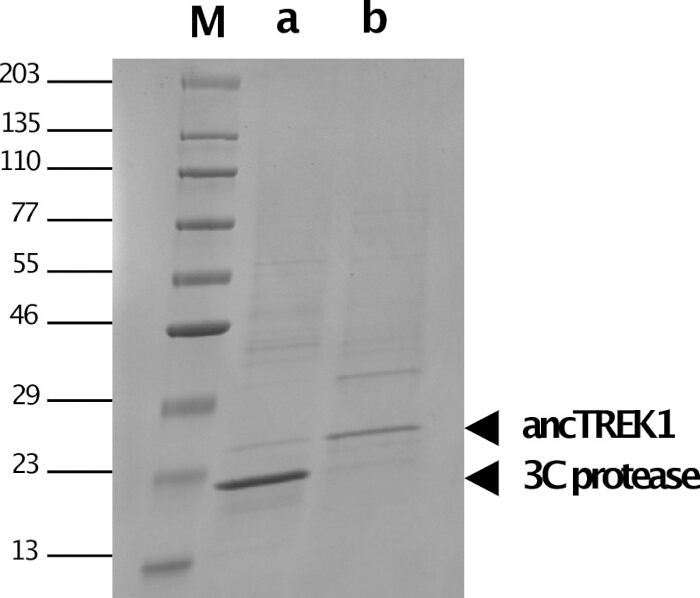
Şekil 7: anti-GFP nanogövde afinite kromatografisi ile ancTREK1 saflaştırması.Coomassie Blue ile boyanmış elüye fraksiyonların SDS-PAGE analizi. Şerit M: moleküler ağırlık belirteci. Şerit a: 3C proteaz varlığını gösteren anti-GFP elüsyon fraksiyonu. Şerit b: konsantrasyon sonrası saflaştırılmış ancTREK1. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Reaktif | Hacmi 50 µL reaksiyon | Final konsantrasyon |
| Çift distile su | Ekleyin 50 µL | — |
| 5× PhusionTM GC tamponu | 10 µL | 1× |
| dNTP'ler (her biri 10 mM) | 1 µL | 200 µM her biri |
| İleri primer (10 µM) | 2.5 µL | 0.5 µM |
| Ters primer (10 µM) | 2.5 µL | 0.5 µM |
| Kalıp DNA (20 ng/µL) | 2 µL | 0,8 ng/µL |
| PhusionTM Yüksek Sadakatli DNA polimeraz | 0.5 µL | 0,02 U/µL |
Tablo 3: ancTREK1 amplifikasyonu için polimeraz zincir reaksiyonu (PCR) kurulumu. Yüksek sadakatli (high-fidelity) bir DNA polimeraz sistemi kullanılarak ancTREK1 DNA dizisinin PCR amplifikasyonu için kullanılan reaktif bileşimi, hacimler ve final konsantrasyonlar.
| Adım | Sıcaklık | Zaman | Döngüler |
| Başlangıç denatürasyonu | 98°C | 3 dk | 1 |
| Denatürasyon | 98°C | 30 s | 30 |
| Tavlama | 68°C | 30 s | 30 |
| Uzatma | 72°C | 30 sn | 30 |
| Final uzatma | 72°C | 3 dk | 1 |
| Bekletin | 12°C | Tutun | — |
Tablo 4: ancTREK1 amplifikasyonu için PCR döngü koşulları. Denatürasyon, bağlanma, uzama ve son uzama basamaklarını içeren, ancTREK1 DNA dizisinin amplifikasyonu için kullanılan termal döngü parametreleri.
| Bileşen | İnsert sindirimi (50 µL) | Vektör sindirimi ve defosforilasyonu (50 µL) |
| çift distile H₂O | Söz konusu metin sağlanmamıştır. Lütfen çevirmemi istediğiniz İngilizce metni paylaşın. 50 µL | Yönelik 50 µL |
| 10× ANZA Kırmızı Tampon Çözeltisi | 5 µL | 5 µL |
| DNA | ancTREK1 PCR ürünü (2 µg) | pEG BacMam C-term 3C eGFP His8 vektör DNA'sı (2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ Alkalen Fosfataz | — | 1 µL |
Tablo 5: ancTREK1 klonlanması için insert ve vektörün restriksiyon enzimi ile sindirimi. EcoRI ve NotI enzimleri kullanılarak ancTREK1 PCR ürünü ve ekspresyon vektörünün restriksiyon sindirimi için reaksiyon koşulları. Vektör sindirimi, kendi kendine ligasyonu önlemek için alkali fosfataz kullanılarak yapılan ek bir defosforilasyon adımını içerir.
| Bileşen | Miktar (20 µL reaksiyon) |
| çift distile H₂O | İçin 20 µL |
| 10× T4 DNA Ligaz Tamponu | 2 µL |
| ancTREK1 ekleme DNA'sı (843 bp) | 10 ng |
| pEG BacMam C-term 3C eGFP His8 vektör DNA'sı (7673 bp) | 30 ng |
| T4 DNA Ligaz | 1 µL |
Tablo 6: ancTREK1 klonlaması için vektör-insert ligasyon koşulları. T4 DNA ligaz kullanılarak ancTREK1 insertinin pEG BacMam ekspresyon vektörüne 1:3 molar oranında ligasyonu için reaksiyon karışımı.
| Bileşen | Final konsantrasyon | Miktar (5 mL'ye kadar) |
| çift distile H₂O | — | 5 mL'ye |
| KCl (1 M) | 200 mM | 1 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| PMSF proteaz inhibitörü (100 mM) | 1 mM | 50 µL |
| Leupeptin proteaz inhibitörü (1 mg/mL) | 1 µg/mL | 5 µL |
| Aprotinin proteaz inhibitörü (1 mg/mL) | 1 µg/mL | 5 µL |
| Pepstatin A proteaz inhibitörü (1 mg/mL) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-Dodesil-β-D-maltosid (DDM, %10) | 1% | 500 µL |
| Kolesteril hemisüksinat (CHS, %2) | 0.10% | 250 µL |
Tablo 7: Membran proteini ekstraksiyonu için liziz tamponu bileşimi. Tuzlar, tamponlayıcı ajanlar, proteaz inhibitörleri, nükleaz ve deterjanlar dahil olmak üzere, membran proteinlerinin çözünürleştirilmesi için kullanılan liziz tamponu formülasyonu. Not: Tamponlar kullanımdan hemen önce taze olarak hazırlanmalıdır.
| Dengeleme tamponu (toplam hacim 10 mL) | ||
| Bileşen | Final konsantrasyonu | Miktar |
| ddH₂O | — | 10 mL'ye tamamla |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Yıkama tamponu (toplam hacim 10 mL) | ||
| Bileşen | Final konsantrasyonu | Miktar |
| ddH₂O | — | 10 mL'ye tamamla |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 30 mM | 60 µL |
| Elüsyon tamponu (toplam hacim 10 mL) | ||
| Bileşen | Final konsantrasyonu | Miktar |
| ddH₂O | — | 10 mL'ye tamamla |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 300 mM | 600 µL |
Tablo 8: ancTREK1 saflaştırması için IMAC tampon bileşimleri. ancTREK1'in immobilize metal iyon afinite kromatografisi saflaştırması için kullanılan dengeleme, yıkama ve elüsyon tamponlarının formülasyonları. Not: çözeltiler 4°C'de altı aya kadar saklanabilir.
| Tampon 1 (10 mL toplam hacim) | ||
| Bileşen | Final konsantrasyon | Miktar |
| ddH₂O | — | 10 mL'ye tamamla |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Tampon 2 (10 mL toplam hacim) | ||
| Bileşen | Final konsantrasyon | Miktar |
| ddH₂O | — | 10 mL'ye tamamla |
| KCl (1 M) | 500 mM | 5 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
Tablo 9: Anti-GFP nanobody afinite kromatografisi için tampon bileşimleri. Anti-GFP nanobody afinite kromatografisi kullanılarak ancTREK1 saflaştırmasında kullanılan tampon formülasyonları. Not: solüsyonlar 4°C'de altı aya kadar saklanabilir.
5. İyon Kanalı Aktivitesini Kaydetmek
- Membran kalitesini değerlendirin
- Faraday kafesi kapağını kapatın.
- Membran kapasitansını değerlendirmek için üçgen bir voltaj dalga formu (100 mV, 10 Hz) uygulayın.
- Membran direncini değerlendirmek için voltaj basamakları (±200 mV'ye kadar ±20 mV'lik artışlar) uygulayın.
- Akım ve gürültü değerlerini izleyin.
NOT: Aksi belirtilmedikçe 5 kHz örnekleme hızı ve 2.5 kHz alçak geçiren filtreleme kullanın.
- ancTREK1 aktivitesini kaydedin
- ancTREK1 proteinini kayıt çözeltisi içerisinde ~2 µg/mL olacak şekilde seyreltin.
NOT: Seyreltme sırasında, kayıt çözeltisine yapılan son seyreltmeden önce deterjan konsantrasyonunu kritik misel konsantrasyonunun (CMC) üzerinde tutmak için gerektiğinde Tampon 1 içinde ara seyreltmeler yapın. - Seyreltilmiş protein çözeltisinden 1 µL'yi cis odasındaki septum açıklığının yakınına ekleyin.
NOT: Membran potansiyeli Vcis − Vtrans olarak tanımlanmıştır. Kanal oryantasyonu bu çalışmada doğrudan belirlenmemiştir; bu nedenle kayıtlar, atanmış membran yönünden ziyade uygulanan voltaj polaritesine göre tanımlanmıştır. - ±120 mV'ye kadar ±20 mV'lik artışlarla voltaj basamakları uygulayın.
- Kanal yerleşme olaylarını izleyin.
NOT: Kanal yerleşmesi, kapalı ve açık durumlar arasındaki belirgin akım geçişleri ile belirtilir. Yerleşme gerçekleşmezse, daha fazla protein ekleyin veya membranı yeniden oluşturun. Birden fazla kanal yerleşirse, membranı yırtın ve protein konsantrasyonunu düşürün.
- ancTREK1 proteinini kayıt çözeltisi içerisinde ~2 µg/mL olacak şekilde seyreltin.
Sonuçlar
PLB membranlarının akım-gerilim (I–V) karakteristikleri
Çift katmanlı membranların doğal hidrofobik yapısı, yüklü türlerin geçişine izin vermez. Ancak, dış bir elektrik alanının uygulanması, nanometre boyutunda geçici gözeneklerin oluşumunu tetikleyerek membran geçirgenliğini ve iletkenliğini etkileyebilir33. 1,2-diphytanoyl-sn-glycero-3-phosphocholine lipidlerinden oluşturulan yapay çift katmanların kalitesini değerlendirmek amacıyla; protein eklenmemiş durumda membran kapasitansı, direnci ve I–V karakteristikleri incelenmiştir. ±20 ile ±200 mV arasında (±20 mV artışlarla) bir dizi voltaj basamağı uygulanmış ve buna bağlı oluşan transmembran akımları kaydedilmiştir. Veriler 5 kHz hızında örneklenmiş ve 2,5 kHz düşük geçiren filtre ile filtrelenmiştir.
Membran kapasitansı (Cm) ve membran direnci (Rm), çift katman kalitesini değerlendirmek için temel parametreleri temsil eder. PLB, membranın bir dirençle paralel bir kapasitör gibi davrandığı eşdeğer bir direnç-kapasitör (RC) devresi ile tanımlanabilir34. Kapasitif bileşen membranın yük depolama yeteneğini yansıtırken, direnç bileşeni iyon geçirgenliğini yansıtır. Üçgen şeklinde bir voltaj dalga formunun uygulanması, şu formüle göre membran kapasitansı ile orantılı olan kare şeklinde bir kapasitif akım yanıtı oluşturur:
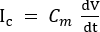 (1)
Burada, Cm membran kapasitansını, V uygulanan voltajı ve t zamanı temsil eder. Membran oluşumunu takiben, çift katmanın kademeli olarak incelmesi nedeniyle kapasitans değerleri zamanla artabilir35. Membran paralel plakalı bir kapasitör olarak düşünüldüğünde, kapasitans membran alanı ve kalınlığı ile şu şekilde ilişkilidir:
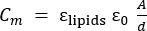 (2)
Burada, εlipids lipid çekirdeğinin dielektrik sabiti (~2), ε0 boşluğun geçirgenliği, A membran alanı ve d membran kalınlığıdır36,37.
Membran direnci, Ohm kanunu kullanılarak belirlenmiştir33:
 (3)
Burada, V uygulanan voltajı ve Rm membran direncini temsil eder. İyon kanallarının yokluğunda, membran akımı 0 pA civarında kalır ve bu durum giga-ohm (GΩ) aralığındaki direnç değerlerine karşılık gelir33.
75 ve 100 µm açıklıklı BLMchipMM cihazları için I–V ilişkisi, 0 ile ±200 mV arasında lineer (ohmik) davranış sergilemiştir. Verilerin lineer fitlenmesi sonucunda, 75 µm açıklık için 847 ± 16 GΩ (n = 6) (Şekil 8A, daireler) ve 100 µm açıklık için 980 ± 32 GΩ (n = 7) (Şekil 8A, kareler) membran direnç değerleri elde edilmiştir. Akım izinin 3 s'lik bölümleri üzerinden ölçülen RMS gürültü değerleri, 100 µm açıklık için 3,1 ± 2 pA (n = 7) ve 75 µm açıklık için 2,6 ± 0,1 pA (n = 6) olarak belirlenmiştir. Membran stabilitesi, toplam 1 h'lik süre boyunca yaklaşık 2 dk aralıklarla direncin ölçülmesiyle değerlendirilmiştir (Şekil 8B). İyi oluşmuş membranlar tutarlı bir şekilde 1 h'den fazla stabil kalmıştır; bu süre çoğu elektrofizyolojik deney için yeterlidir. Membranlar genellikle ±200 mV'ye kadar uygulanan potansiyelleri instabilite belirtisi göstermeden tolere etmiş, ancak tekil bilayer'a bağlı olarak ±220 ile ±300 mV arasında breakdown gerçekleşmiştir. 75 µm açıklıklar için 40 ile 60 pF, 100 µm açıklıklar için 60 ile 90 pF arasında kapasitans değerlerine ve 100 mV'de ≤0,5 pA akım değerlerine sahip olan membranlar protein insersiyonu için uygun kabul edilmiştir.
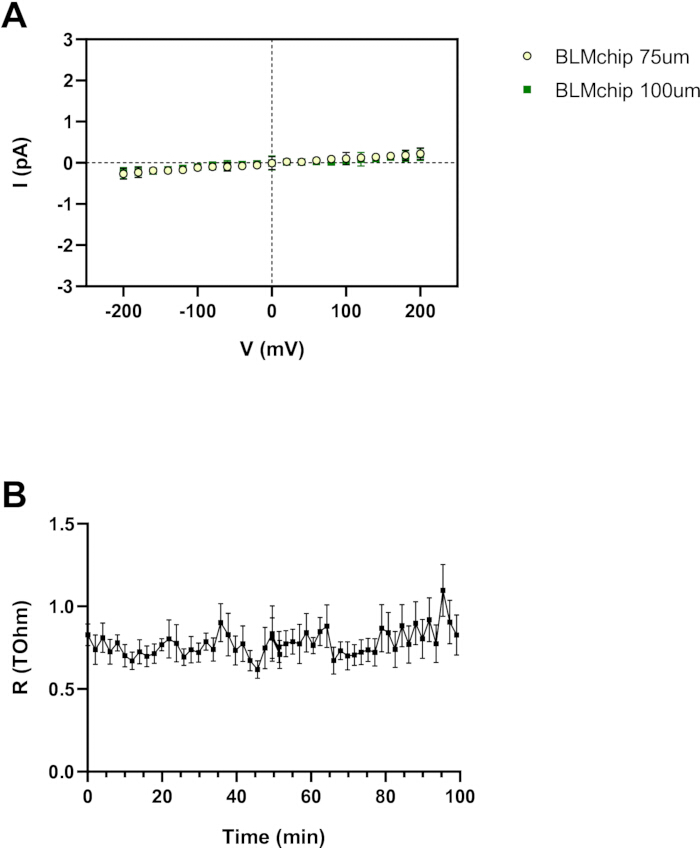
Şekil 8: PLB'lerin elektriksel karakterizasyonu. (A) 75 µm ve 100 µm açıklıklarda oluşturulan çift katmanlarınle akım-gerilim (I–V) ilişkileri, ±200 mV arasında lineer (omik) davranış sergilemektedir. Lineer regresyon, sırasıyla 847 ± 16 GΩ (n = 6) ve 980 ± 32 GΩ (n = 7) membran direnç değerleri vermektedir. (B) Membran stabilitesi, direncin 1 sa boyunca 2 dk aralıklarla izlenmesiyle değerlendirilmiştir. Membranlar ±200 mV'ye kadar stabil kalmakta ve ±220 ile ±300 mV arasındaki gerilimlerde yırtılmaktadır. Veriler, ortalama ± ortalamanın standart hatası (SEM) olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
ancTREK1 tek kanal davranışının başlangıç karakterizasyonu
Sentetik ancTREK1 saflaştırılmış ve PLB'ler içine yeniden konstrükt edilmiş; tek kanal aktivitesi, −120 ile 120 mV arasında 20 mV artışlarla uygulanan voltaj basamak protokolleri kullanılarak izlenmiştir. Tek kanal kayıtları (Şekil 9A ve Şekil 9B), K2P kanallarının karakteristik titreme davranışını ortaya koymuştur38. 80 mV'de ortalama akım genliği 13,02 ± 0,78 pA (n = 5) iken, −80 mV'de akım genliği −18,72 ± 0,25 pA'e (n = 5) yükselmiştir (Şekil 9C). Ortaya çıkan I–V ilişkisi, Mg2+-içermeyen simetrik 200 mM potasyum koşulları altında hem pozitif hem de negatif potansiyellerde ölçülebilir tek kanal akımlarının olduğunu göstermiştir (Şekil 9D). Akım genlikleri 5 kHz hızında edinilen ve 2,5 kHz düşük geçiren filtre ile filtrelenen kayıtların tüm nokta histogramlarından tahmin edildiği için, bu I–V ilişkisi kapsamlı bir biyofiziksel karakterizasyondan ziyade tanımlayıcı bir prensip kanıtı olarak sunulmuştur.
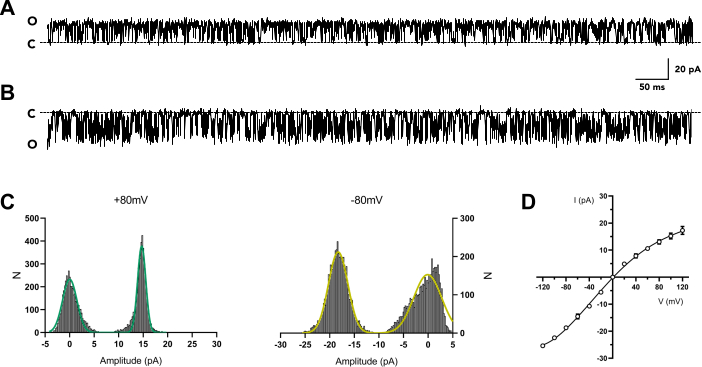
Şekil 9: Sentetik ancTREK1'in tek kanal aktivitesi. (A ve B) Sırasıyla 80 mV ve −80 mV'de kaydedilen temsili tek kanal akım izleri. Kesikli çizgiler kapalı kanal seviyesini belirtir. (C) Pozitif (sol) ve negatif (sağ) potansiyeller için tüm nokta genlik histogramları. (D) Divalan katyonlar olmaksızın simetrik 200 mM potasyum (K+) koşulları altında ancTREK1'in I–V ilişkisi. Eğri dördüncü derece bir polinom kullanılarak uydurulmuştur ve iletkenlik değerleri ±80 mV'deki eğimden türetilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
ancTREK1, memeli TREK1 kanallarına kıyasla genişletilmiş N- ve C-terminal bölgelerden yoksun olsa da, yeniden yapılandırıldığında fonksiyonel olarak aktif kalmıştır. Pozitif potansiyellerde yüksek ve düşük iletkenlik modları (sırasıyla 132 ± 5 pS ve 41 ± 5 pS) sergileyen memeli TREK1'in39 aksine, ancTREK1 yalnızca yüksek iletkenlik modu göstermiştir. Pozitif potansiyellerdeki tek kanal iletkenliği 112.8 ± 10.8 pS (80 mV, n = 5) olarak belirlenmiş olup, bu değer TREK kanalları için rapor edilen değerlerle (simetrik potasyum koşulları altında 85–130 pS) uyumludur38,39,40,41. Negatif potansiyellerde iletkenlik, daha önce rapor edilen TREK1 davranımıyla uyumlu olarak 205.6 ± 2.05 pS'ye (−80 mV, n = 5) yükselmiştir39. Özellikle ancTREK1, eksize patch konfigürasyonları kullanılarak elde edilen TREK1 ölçümlerine kıyasla daha yüksek bir normalize açık olasılığı (NPo) sergilemiştir42. NPo–voltaj ilişkisi, pozitif potansiyellerde artan kanal aktivitesi göstermiş ve 80 mV'de 0.78 ± 0.02'ye (n = 5) ulaşmıştır. Buna karşılık NPo, negatif potansiyellerde azalmış; −80 mV'de 0.53 ± 0.04 ve −120 mV'de 0.28 ± 0.03 değerleri almıştır (Şekil 10).
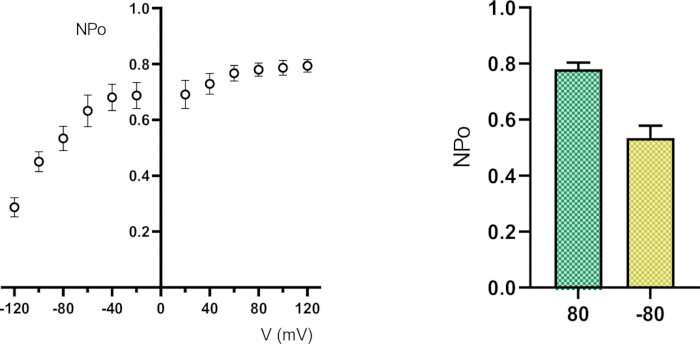
Şekil 10: ancTREK1 tek kanal aktivitesinin voltaja bağımlılık analizi. Membran potansiyelinin bir fonksiyonu olarak normalize edilmiş açık olasılığı (NPo) (sol) ve 80 mV ile −80 mV'deki NPo'nun karşılaştırması (sağ); pozitif potansiyellerde artmış kanal açılmasını göstermektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil 1. Sentetik atasal iki gözenekli domain potasyum (K2P) kanalının (ancTREK1) amino asit dizisi. Elektrofizyolojik kayıtlar için kullanılan ancTREK1'in tam uzunluktaki amino asit dizisi. Dizi; UniProt ve NCBI veri tabanlarından toplanan ortolog diziler dahil olmak üzere, TREK/TRAAK familyası üyelerinden oluşan küratörlü bir veri setinden atasal dizi çıkarımıyla, korunan gözenek motiflerine göre filtrelenerek, hizalanarak ve maksimum olabilirlik filogenetiği kullanılarak analiz edilmek suretiyle yeniden oluşturulmuştur.Lütfen bu dosyayı indirmek için buraya tıklayın.
Tartışma
Bu çalışmada, sentetik bir K2P kanalının elektrofizyolojik özelliklerini tek molekül düzeyinde değerlendirmek için PLB tekniğini kullandık. Bilimsel literatürde tanımlanan çeşitli düzlemsel lipid modelleri arasından, iki sulu bölmeyi ayıran dikey polar olmayan bir yüzeye delinmiş 50 ile 140 µm arasında çapa sahip bir açıklık üzerine boyanan BLM'lerin oluşturulmasına odaklandık. Bu konfigürasyon, lipid membran hazırlığı ve elektrolit bileşimi (örneğin, iyonik güç ve pH) dahil olmak üzere deneysel parametreler üzerinde kontrol sağlarken hücre membranı ortamının simüle edilmesine olanak tanır3. BLM'leri, iki sulu çözeltinin hava-su ara yüzeyine önceden yayılmış iki lipid tek tabakasının, su seviyesinin yükseltilmesiyle açıklık üzerinde birleşerek membranın kendiliğinden toplandığı Montal-Mueller (katlama) yöntemini5 kullanarak yeniden oluşturduk.
Burada sunulan membran oluşum protokolü oldukça sezgiseldir; ancak, birkaç kritik adım deneysel başarıyı güçlü bir şekilde etkilemektedir. BLMchipMM ile amplifikatör arasında uygun elektriksel bağlantıyı sağlamak için, PCB soketlerine yerleştirilen Ag/AgCl tel uçlarının klorlanmasından kaçınmak esastır. BLMchipMM montajı sırasında tellerin yanlış konumlandırılması, amplifikatör kasasıyla temasa yol açarak kısa devrelere ve sinyal doygunluğuna neden olabilir. Açıklık ön işlem prosedürü bir diğer kritik faktördür: ön işlem solüsyonunun uygulanması sırasında aşırı kuvvet uygulanması poliimid septuma zarar verebilirken, elektrolit solüsyonunun yanlış kullanımı —özellikle açıklık bölgesinin ıslatılması— membran oluşumunu bozabilir. Ayrıca, tekrarlanabilirlik için BLMchipMM kayıt odasının dikkatlice temizlenmesi esastır. %100 izopropil alkol kullanımı, ardından iyice durulama ve tamamen kurutma işlemi, kalıntıların sonraki deneylere müdahale etmemesini sağlar.
Protokol üzerinde çeşitli modifikasyonlar mümkündür. Çamaşır suyu ile emdirme yoluyla klorlama pratik ve yaygın olarak kullanılan bir yaklaşım olsa da, elektrokaplama gibi alternatif yöntemler de uygulanabilir43. Benzer şekilde, ön işlem ve lipid hazırlama süreçlerinde varyasyonlar yapılabilir. Standart ön işlem çözeltileri tipik olarak uçucu hidrokarbon çözücüler içinde çözülmüş uzun zincirli alkanlardan oluşur36; n-hekzan içinde %1 heksadekan çözeltisi yaygın olarak kullanılsa da diğer çözücüler de uygun olabilir. Lipid kompozisyonu da deneysel gereksinimlere bağlı olarak uyarlanabilir. DPhPC lipidleri optimal membran stabilitesi sağlarken, doğal veya sentetik kompozisyonlar dahil olmak üzere alternatif lipid karışımları da kullanılabilir36. Katlama yöntemiyle oluşturulan dikey lipid çift katmanlarının temel bir avantajı, her bir yaprağın farklı lipid türlerinden oluştuğu asimetrik membranlar oluşturabilme yeteneğidir5,22; bu özellik, membran protein fonksiyonunu etkilediği bilinmektedir.
Membran oluşumundaki sorunların giderilmesi genellikle sulu faz seviyelerinin ayarlanmasını içerir. Membran oluşumu başlangıçta gerçekleşmezse, bir bölmedeki tampon seviyesinin tekrarlanan şekilde düşürülmesi ve yükseltilmesi çift katman montajını kolaylaştırabilir. Başarısız olunması durumunda, açıklığın üzerine bir hava kabarcığı uygulamak lipid yeniden dağılımını ve membran oluşumunu teşvik edebilir. Devam eden başarısızlıklar genellikle ön işlem veya kontaminasyonla ilgili sorunlara işaret eder; bu durumda kayıt odasının temizlenmesi ve deneyin yeniden başlatılması önerilir.
Bu düzeneğin temel bileşenleri eNPR 100 kHz kompakt amplifikatör ve BLMchipMM'den oluşmaktadır. Amplifikatör, kasa yapısı kendi başına etkili bir elektromanyetik kalkan sağladığından, harici Faraday kafesleri dahil olmak üzere ek harici cihaz ihtiyacını ortadan kaldıran kompakt, düşük gürültülü bir voltaj klempleme sistemidir. BLMchipMM, amplifikatöre doğrudan bağlantı için bir PCB ile entegre edilmiş, önceden monte edilmiş, minyatürleştirilmiş bir kayıt odasıdır. Bu sistem, yapay membranın oluşturulduğu, konik uçlu lazer delikli bir açıklığa sahip poliimid bir septum ile ayrılmış iki C şeklinde bölmeden oluşur. Yaklaşık 110 µL bölme hacimlerine sahip olan sistemin düşük boyutları, reaktif tüketimini önemli ölçüde azaltır ve iç kapasitansı düşürerek sinyal kalitesini artırır. Ayrıca cihaz, uygun temizleme prosedürleri uygulandığında sökülmeden defalarca yeniden kullanılabilir, bu da değişkenliği azaltarak deneysel tekrarlanabilirliği artırır.
Bu avantajlara rağmen, bazı sınırlamalar göz önünde bulundurulmalıdır. Mevcut düzenek; sıcaklık, basınç veya perfüzyon kontrolü için entegre modüller içermemektedir. İntrinsik membran geriliminin TREK144,45,46 gibi mekanosensitif kanalları etkilediği bildirilmiştir; ancak mevcut düzenek membran geriliminin kontrollü manipülasyonunu içermemektedir ve burada herhangi bir mekanistik sonuç çıkarılmamıştır. Genel olarak bu platform, yapay membranlarda iyon kanalı aktivitesinin kaydedilmesi için sağlam ve erişilebilir bir sistem sunmaktadır. Bu çalışmada, TREK alt ailesinin bilgisayarlı ortamda türetilmiş bir atasal kanalı olan sentetik K2P kanalı ancTREK1'i inceledik. Kaydedilen veriler, PLB'lere rekonstitüe edilen saflaştırılmış ancTREK1'in, bildirilen TREK1 benzeri iletkenlik özellikleri ile tutarlı tek kanal davranışı sergilediğini göstermektedir. Mg2+-içermeyen simetrik 200 mM potasyum koşulları altında kanal, 80 mV'ta yaklaşık 13 pA ve −80 mV'ta −19 pA genlik değerleri ile ölçülebilir I–V ilişkisi sergilemektedir. Ayrıca ancTREK1, TREK1 kanallarında gözlemlenen karakteristik yüksek iletkenlik modunu sergilemekte olup, negatif potansiyellerde (~205,6 pS) pozitif potansiyellere (~112,8 pS) kıyasla daha yüksek iletkenliğe sahiptir. Özellikle ancTREK1, eksize patch konfigürasyonlarındaki42 gözlemlerden farklı olarak, pozitif potansiyellerde artmış NPo (80 mV'ta 0,78) ve negatif potansiyellerde azalmış NPo (−80 mV'ta 0,53 ve −120 mV'ta 0,28) göstermektedir. Bu bulgular, sistemin rekonstitüe membran proteinlerinin prensip kanıtlama (proof-of-principle) tek kanal kayıtları için kullanımını desteklemektedir.
Açıklamalar
F.T. Elements S.r.l.'nin CEO'su, A.P. ise şirket çalışanıdır. Diğer tüm yazarlar herhangi bir çıkar çatışması olmadığını beyan etmektedir.
Teşekkürler
Hücre transfeksiyon prosedürüne yardımcı olduğu için Sofia Diletta Guzzeloni'ye teşekkür ederiz. Elements çalışanları Dr. Leon Juarez ve Dr. Michelangelo Paci'ye minnettarız. Bu çalışma; İtalya Pavia Üniversitesi Moleküler Tıp Bölümü'nün Dipartimenti di Eccellenza (2023–2027) girişimi, Cariplo Vakfı (#2019-1809) ve M.L.'ye yönelik PNRR Araştırma Programı CN00000013 “National Centre for HPC, Big Data and Quantum Computing” tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) | Avanti Polar Lipids | 850356P | Yapay lipid çift tabakalarının oluşturulması |
| 2-Propanol (≥99.5%) | Honeywell | 24137-5L | BLMchipMM cihazının temizlenmesi |
| Agaroz | Fisher BioReagents | BP160-500 | Agaroz jellerin hazırlanması |
| Agaroz jel yatay elektroforez sistemi | BTLabSystems | BT102 | DNA fragmanlarının ayrılması |
| Ampisilin | Fisher BioReagents | BP1760-25 | Transforme edilmiş bakterilerin seçimi |
| Anti-GFP nanobody Sepharose reçinesi (ev yapımı) | — | — | GFP etiketli proteinlerin afinite saflaştırılması |
| Anza Alkalin Fosfataz | Invitrogen | IVGN2208 | Vektör defosforilasyonu |
| Anza EcoRI | Invitrogen | IVGN0116 | Restriksiyon sindirimi |
| Anza NotI | Invitrogen | IVGN0014 | Restriksiyon sindirimi |
| Anza Red Buffer (10×) | Invitrogen | IVGN2008 | Restriksiyon sindirim tamponu |
| Aprotinin proteaz inhibitörü | Fisher Scientific | 15996008 | Protein degradasyonunun önlenmesi |
| Masaüstü santrifüj | Eppendorf | EP5420000164 | Hücre çöktürme ve numune hazırlama |
| BLMchipMM | Elements s.r.l. | — | Planar lipid çift tabakalarının oluşturulması |
| Kolesteril hemisuksinat (CHS) | Anatrace | CH210 | Membran proteinlerinin stabilizasyonu |
| Coomassie Brilliant Blue | Sigma-Aldrich | 1125530025 | Protein boyama |
| Sıradan ev tipi çamaşır suyu | — | — | Ag tellerin klorlanması |
| DNaz I | Sigma-Aldrich | 11284932001 | Lizat viskozitesinin azaltılması |
| Çift distile su | — | — | Tamponların ve çözeltilerin hazırlanması |
| Etanol (saf, 99.9%) | Girelli Alcool s.r.l. | — | Ag/AgCl tellerin temizlenmesi |
| Etidyum bromür | Sigma-Aldrich | 1116080030 | DNA boyama |
| Ekstra ince kumlu zımpara kağıdı | — | — | Tellerden Ag/AgCl kaplamanın uzaklaştırılması |
| eNPR 100 kHz amplifikatör | Elements s.r.l. | — | Elektrofizyolojik kayıtlar |
| Agarozdan DNA ekstraksiyonu için Gel-Out kiti | A&A Biotechnology | 023-250 | DNA saflaştırma |
| GeneRuler 1 kb DNA merdiveni | Thermo Fisher Scientific | SM0311 | DNA boyut referansı |
| FreeStyle™ 293-F | Thermo Fisher Scientific | R79007 | ancTREK1 protein ekspresyonu |
| HEPES (≥99.5%) | Sigma-Aldrich | H3375-500G | Tamponlama ajanı |
| Heksadekan (≥99%) | Sigma-Aldrich | H6703-100ML | Açıklık ön işlemi |
| Heksan (≥99%) | Sigma-Aldrich | 139386-100ML | Lipid çözücü |
| Ev yapımı 5× DNA yükleme boyası | — | — | DNA numune hazırlama |
| Ev yapımı 6× Laemmli SDS tamponu (indirgeyici) | — | — | Protein numune hazırlama |
| Ev yapımı boya giderme çözeltisi | — | — | SDS-PAGE jellerinin boyasının giderilmesi |
| Ev yapımı HRV-3C proteaz | — | — | Füzyon proteinlerin kesilmesi |
| Ev yapımı SDS-PAGE yürütme tamponu (10×) | — | — | SDS-PAGE elektroforez tamponu |
| İmidazol | Alfa Aesar | A10221 | His etiketli proteinlerin elüsyonu |
| Seri içi (in-batch) saflaştırma kolonları | — | — | Protein saflaştırma iş akışları |
| Innova44 çalkalamalı inkübatör | New Brunswick Innova | M1282 | Hücre kültürü büyümesi |
| KCl | Honeywell | 31248-1KG | Elektrolit ve tampon hazırlama |
| LB besiyeri (Lennox) | Condalab | 1231 | Bakteriyel kültür |
| Leupeptin proteaz inhibitörü | Thermo Scientific | 78435 | Protein degradasyonunun önlenmesi |
| Magnezyum klorür hekzahidrat | Acros Organics | 447700010 | Tampon bileşeni |
| Nanodrop spektrofotometre | DeNovix | DS-11 | DNA ve protein kantifikasyonu |
| n-Dodesil-β-D-maltosit (DDM) | NeoBiotech | NB-19-0056-25G | Membran proteini solubilizasyonu |
| Ni Sepharose High Performance Reçinesi | Cytiva | 17526801 | IMAC saflaştırma |
| Dizüstü bilgisayar | — | — | Cihaz kontrolü ve veri toplama |
| Optima LE-80K ultrasantrifüj | Beckman | 365668 | Membran fraksiyonu izolasyonu |
| Pentan (≥99%) | Sigma-Aldrich | 236705-100ML | Lipid çözücü |
| Pepstatin A proteaz inhibitörü | Thermo Scientific | 78436 | Protein degradasyonunun önlenmesi |
| Phusion GC Tamponu (5×) | Thermo Fisher Scientific | F519 | PCR tamponu |
| Phusion Yüksek Sadakatli DNA Polimeraz | Thermo Fisher Scientific | F530S | PCR amplifikasyonu |
| PMSF proteaz inhibitörü | Thermo Scientific | 36978 | Lizis sırasında protein koruması |
| Polietilenimin (PEI) | Clinisciences | 24765-100 | Transfeksiyon ajanı |
| ProteinEle hazır dökülmüş Tris-glisin jel (4–20%) | TransGen Biotech | DG101-01-V2 | Protein ayrımı |
| SDS-PAGE jel elektroforez sistemi | Bio-Rad | 1658002FC | Protein elektroforezi |
| Sodyum bütirat | Fisher Scientific | A11079 | Protein ekspresyonu artırıcı |
| T4 DNA ligaz | Thermo Fisher Scientific | EL0011 | DNA ligasyonu |
| T4 DNA ligaz tamponu (10×) | Thermo Fisher Scientific | B69 | Ligasyon tamponu |
| Termal döngüleyici (Mastercycler Nexus) | Eppendorf | 6331000025 | PCR amplifikasyonu |
| Tris baz | Sigma-Aldrich | T1503-1KG | Tampon hazırlama |
| Lesitin ve polisorbate 80 içeren Tripton SOYA agar | HiMedia | M449-5KG | Bakteriyel ekim |
| İki adet Ag tel | Elements s.r.l. | — | Elektrofizyoloji için elektrotlar |
| Ultra-spin konsantratör (50 kDa kesme sınırı) | Merck Amicon | UFC8050 | Protein konsantrasyonu |
| pEG BacMam ekspresyon vektörü | Addgene | 160687 | Protein ekspresyonu |
| USB kablosu | — | — | Amplifikatör ve bilgisayar arasındaki bağlantı |
Kaynaklar
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
Yeniden basım ve izinler
