Zaman geçişli görüntüleme kullanılarak, Hydra kürelerinin tam yenilenme süreci takip edilebilir. Bu protokol, Hydra sferoidlerinin oluşumunu tanımlar, çeşitli montaj stratejilerini tartışır ve dönen disk konfokal mikroskopisi ile ışık tabakası floresan mikroskopisi kullanılarak uzun süreli, canlı görüntülemenin nasıl yapılacağını detaylandırır.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Yenilenen Hydra Sferoidlerinin Hazırlanması ve Canlı Görüntülemesi
Bu makalede
Özet
Özet
Hydra, olağanüstü yenileyici kapasitesiyle ünlüdür. İlginç bir şekilde, Hydra sferoidleri olarak adlandırılan küçük yenilenen Hydra dokusu parçaları bir organizatör de novo oluşturabilir. Yerleştikten sonra, bu organizatör çevredeki dokuyu uygun ağız yapılarına ayırmaya yönlendirir. Birkaç gün içinde küre küçük ama tam desenli bir polipe dönüşebilir. Bu sürecin nispeten kısa zaman çizelgesi, tüm sürecin sürekli zaman geçişli görüntülemesini mümkün kılarak rejenerasyonun mekansal ve zamansal dinamiklerini incelemek için benzersiz bir fırsat sunar. Burada, yenilenen Hydra sferoidlerinin zaman geçişli veri setleri oluşturmak için ayrıntılı bir iş akışı sunuyoruz ve temsil eden sonuçları gösteriyoruz. Protokol, sferoid üretimi için ayrıntılı bir prosedür ve görüntüleme için optimal örneklerin seçilmesi yönergelerini içerir. Canlı örneklerin uzun vadeli görüntülemesi için uygun montaj stratejilerini tartışıyoruz ve hem dönen disk konfokal hem de ışık tabakası mikroskopları kullanılarak görüntüleme yaklaşımlarını gösteriyoruz. Burada açıklanan prensipler, dinamik morfogenetik süreçlerin uzun vadeli görüntüleme kullanılarak incelenebilen diğer model sistemlerine geniş çapta uygulanabilir.
Giriş
Hydra, olağanüstü yenileyici yeteneğiyle tanınan küçük, tatlı su polipidir. Vücut kıvrımının ortasından çıkarılan doku parçaları, Hydra'nın iki epitel tabakası olan ektoderm ve endodermden oluşan boş bir küre dönüşür. Rejenerasyon sırasında, bu Hydra sferoidleri bir organizatör de novo1 oluşturur. Yaklaşık 3 gün içinde vücut ekseni uzar ve baş ile ayak uçlarındaki hücreler farklılaşır. Bu nispeten kısa zaman dilimi nedeniyle, tüm rejeneratif süreç canlı görüntüleme ile kaydedilebilir. Zaman geçişli veri setleri, Hydra sferoidlerininrejenerasyon 2 sırasında yaşadığı enflasyon ve deflasyon döngülerini ortaya koymada önemli rol oynamıştır. Bu osmotik olarak yönlendirilen mekanik salınımların oluşturduğu doku gerilmesi,organizatör 3'ün lokalizasyonuna katkıda bulunur.
Başarılı uzun vadeli canlı görüntüleme, hareket artefaktlarını önlemek için hızlı görüntü alımı gerektirir ve aynı zamanda numunenin foto zarar vermesini önlemek için ışığa maruz kalmayı en aza indirir. Klasik tek noktalı taramalı konfokal mikroskopi bu gereksinimleri karşılamaz. Ancak, gelişmiş teknikler geliştirilmiştir. Bu protokolde, iki yaygın olarak popüler olan modaliteye odaklanacağız: dönen disk konfokal mikroskopisi (SDCM) ve ışık tabakası floresan mikroskopisi (LSFM). SDCM, iğne deliklerinden oluşan bir dizi ile hızla dönen bir diskkullanır 4. Bu tasarım, numune içindeki birden fazla noktanın eşzamanlı uyarılmasını ve algılanmasını sağlarken, konfokiliteyi korur. Bu paralel alım, görüntülemeyi büyük ölçüde hızlandırır ve böylece hareketli örneklerin hareketsiz yakalanmasına olanak tanır. Ek bir fayda olarak, kısaltılmış maruz kalma fototoksisiteyi önemli ölçüde azaltır. Yine de, sınırlı görüntüleme derinliği nedeniyle, daha büyük yapıların canlı görüntülenmesi zordur.
LSFM adını, yalnızca bu düzlem 5 içinde floroforları uyarmak için kullanılan ince ışık tabakasından alır. Algılanan ışığı kısıtlayarak eksenel çözünürlük yaratan iğne deliğinin aksine, ışık tabakası mikroskopları aksen çözünürlüğü uyarılmış hacmi kısıtlayarak sağlar. Tespit hedefi, ışık tabakasına 90° açı ile floresansı toplayan dik konumda konumlandırılmıştır. Bu, bir kameranın tüm aydınlatılan düzlemden floresan sinyalini tek bir pozlamada toplamasına olanak tanır, böylece alım hızını artırır ve fototoksisiteyi en aza indirir. Bir veya iki yatay konumlanmış tespit hedefi etrafında inşa edilen yaygın LSFM geometrileri, aynı örnekin birden fazla açıdan görüntülenebilmesi avantajına sahiptir. Mikroskop iki tespit hedefiyle donatılmışsa, örnekler aynı anda iki taraftangörüntülenebilir 6. Alternatif olarak, bir örnek döndürülerek birden fazla açıdan görüş elde edilebilir.
Canlı Hydra'yı incelemek için kullanılan görüntüleme teknikleri son yıllarda önemli ölçüde ilerlemiş ve rejenerasyonla ilişkili morfolojik değişikliklerin nöronal aktivitedinamikleri 7,8,9,10 olarak gözlemlenmesini mümkün kılmıştır. Burada, daha önce yayımlanmış 6,11 protokollerini genişletmekte, yenilenen Hydra sferoidlerinin canlı görüntülemesi için çeşitli yaklaşımları göstermeye odaklanıyoruz. Küçük doku parçalarından Hydra sferoidleri üretme yöntemlerini tanımlıyoruz ve doğru katlanmış örneklerin belirlenmesi için rehberler sunuyoruz. Canlı görüntüleme için yaygın olarak kullanılan üç montaj stratejisi için adım adım talimatlar sunulmaktadır. SDCM için yaygın bir geometri olan ters mikroskopta görüntüleme için sferoidler genellikle agaroz kuyularına monte edilir. Bu, görüş alanı içinde kalırken serbestçe hareket edip dönmelerini sağlar. Flüoretilen propilen (FEP), kırılma indeksi (1.34) suya yakın olduğu için montaj için yaygın olarak kullanılır (1.33). FEP folyo, özel deneysel ihtiyaçlara göre özel görüntüleme odalarına termorem yapılabilir. Benzer şekilde, agaroza cam kapillyarların içine sferoidlerin gömülmesi, LSFM için standart bir yaklaşımdır. Bu teknik, kapiler başına örnek sayısını sınırlamasına rağmen, çoklu görüş algılanması için gereken rotasyonu kolaylaştırır. Son olarak, hem SDCM hem de LSFM kullanılarak canlı görüntülemenin nasıl yapılacağını gösteriyoruz ve deneysel hedeflere bağlı olarak uygun tekniği seçmek için temel hususları tartışıyoruz. Bu protokol Hydra için optimize edilmiş olsa da, temel ilkeleri dinamik morfogenetik süreçleri incelemek için uzun vadeli görüntülemeye dayanan diğer model sistemlerine geniş çapta uygulanabilir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
Tanımlanan tüm prosedürler, hayvan araştırmaları için İsviçre ulusal yönetmeliklerinin etik yönergelerine uygun olarak gerçekleştirilmiştir. Deneye başlamadan önce, Hydra haftada 3 kez, en az 2 hafta boyunca normal şekilde beslenmelidir. Deneylerde kullanılan Hydra sağlıklıolmalı, cinsel organları yok ve tomurcuklanmamış. Yakın zamanda tomurcuklanmış Hydra, kolonideki diğer Hydra'lara kıyasla daha kısa boylu olması nedeniyle tanınabiliyor ve uzak durmalıdır.
1. Hydra Kürelerinin Hazırlanması (Şekil 1)
- Önce dissosiyasyon ortamı (DM; tarif için bkz. Tablo 1) bir tabak hazırla. DM deney için oda sıcaklığında olmalı.
- İş alanının geri kalanını hazırlayın: 10 cm'lik bir hücre kültürü kabının kapağını stereoskopun altına yerleştirin ve üzerine bir katman Hydra ortamı (HM; tarif için bkz. Tablo 1) ekleyin. Hücre kültürü kabının kendisi, kalan Hydra dokusunu toplamak için kullanılabilir. Son olarak, Hydra'yı topla ve stereoskopa yakın bir tabağa yerleştir.
- Bir Hydra'yı stereoskopun altına taşımak için cam bir Pasteur pipeti kullanın. Pasteur pipetlerinin kütleştirilmesi önerilir. Bunu başarmak için, uçlarını hızlıca alevde tutun.
- Sıklıkla Hydra ortamın yüzeyinde yüzer; Hydra'yı kapağın dibine kadar tekrar pipetle yapın.
- Hidra'yı B2 ve B3 vücut bölgeleri arasında tek, düz bir kesim oluşturarak ikiye bölün (Şekil 1A,B). Kürelerin kesildiği vücut kısmında tutarlı olun, çünkü bu kürelerin davranışını büyük ölçüde etkiler.
NOT: Belirli bir vücut bölümünde kesim yapmak gerekmiyorsa, vücut ekseninin ortasından küreler kullanın. Güçlü fenotipe sahip hayvanlar için (örneğin, çok sayıda ektopik başlı hayvanlar), vücut ekseninin ortasına en çok benzeyen bölgelere dikkat edin. - Kesimden sonra Hydra tamamen rahatlanana kadar bekle. Gerekirse, tekrar batması için yüzen vücut parçalarını tekrar pipetleyin.
- Ikiye bölünen doku gevşedikten sonra, kesilen doku ucu şişmiş kalır. Şişliğin bittiği yerde ikinci bir kesik yapın ve doku halkası oluşturulur (Şekil 1C). Hydra'nın her bir yarısından doku halkaları kesilebilir.
- Kalan baş ve ayak uçlarını kapaktan çıkarın. Kalan vücut parçaları yenilenmesi için bırakılabilir. Hydra düzgünce yenilendikten ve en az 2 hafta beslendikten sonra başka deneyler için yeniden kullanılabilirler.
- Mendil halkalarını açın. Açık halkaları birden fazla doku parçasına kesin (Şekil 1D). ~100-150 μm x ~300-500 μm boyutlarında dikdörtgen doku parçalarını hedefleyin.
NOT: Halka başına kesilebilecek parça sayısı değişkendir. Örneğin, 105 suşundaki Hydralar genellikle AEP suşundaki Hydra'lardan çok daha incedir. Bir doku halkası iki düzgün doku parçası üretemeyecek kadar küçükse, açık halkayı uygun boyutta bir doku parçası oluşturmak için kırpın ve diğer küçük parçayı atın. - Doku parçalarını oda sıcaklığındaki DM'ye taşıyın. Doku parçalarıyla birlikte taşınan HM miktarını en aza indirin.
- Küreleri 3-4 saat boyunca DM'ye katlamaya bırak. Kürelerin doğru şekilde katlanıp katlanmadığını değerlendirin. Başarılı şekilde katlanmış sferoidler yuvarlak bir şekle sahip olmalı ve tamamen ektodermle örtülü olmalıdır (Şekil 2A-D).
NOT: Eğer kürelerin yarısından fazlası henüz başarılı bir şekilde katlanmadıysa, sferoidleri DM'de 30 dakika daha bırakın. - 250-350 μm çaplı katlanmış küreleri seçin (Şekil 2E-H). Plastik lifler gibi dışsal maddelerle kontamine olan sferoidlerden kaçının. Seçilen küreleri monte etmeden önce HM'ye taşıyın.
NOT: Eğer deney takviyeli bir ortamda (örneğin ilaç tedavisi) yapılacaksa, sferoidleri hemen bu ortama taşıyın. Unutmayın ki küreler HM'ye taşındığında salınım yapmaya başlarlar.
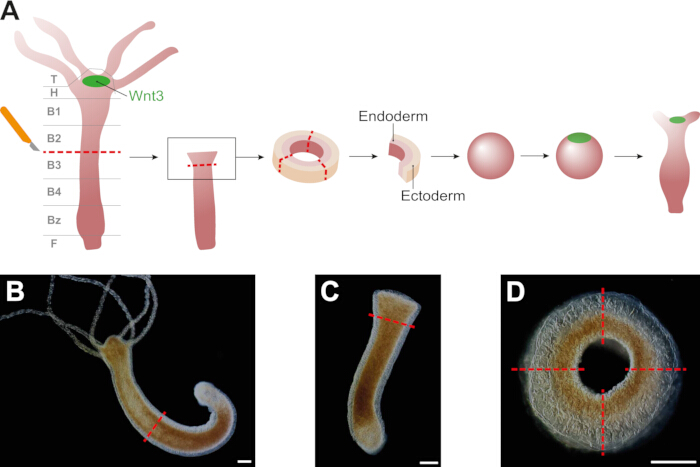
Şekil 1: Hydra küresi hazırlığı. (A) Hydra kürelerinin oluşumunu gösteren şema. Sferoidler, eksen oluşumunu, uzamasını ve farklılaşmasını sağlayan bir Wnt3+ düzenleyicisini yeniden kurarak simetriyi kırır. (B) İlk kesim, (A)'da belirtildiği gibi orta gövdede, B2 ve B3 bölgeleri arasındaki sınırda yapılır. (C) Her ortaya çıkan yarı, şişmiş bölgenin hemen altından tekrar kesilir. (D) Üretilen doku halkalar daha sonra kesilir ve halka boyutuna bağlı olarak 2-4 doku parçasına ayrılır. Ölçek çubukları: 250 μm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
| Medium | Bileşim | Depolama sıcaklığı | ||
| Dissosiyasyon ortamı (DM) | 3,6 mM Kl, 6 mM CaCl2, 1,2 mM MgSO4, 6 mM sodyum sitrat, 6 mM sodyum piruvat, 4 mM glukoz ve 12,5 mM TES (pH 6,9) | 4 °C | ||
| Hydra ortamı (HM) | 1 mM CaCl2, 0.2 mM NaHCO3, 0.02 mM KCL, 0.02 mM MgCl2 ve 0.2 mM tris-HCl (pH 7.4) | Oda sıcaklığı | ||
Tablo 1: Medya kompozisyonları ve depolama.
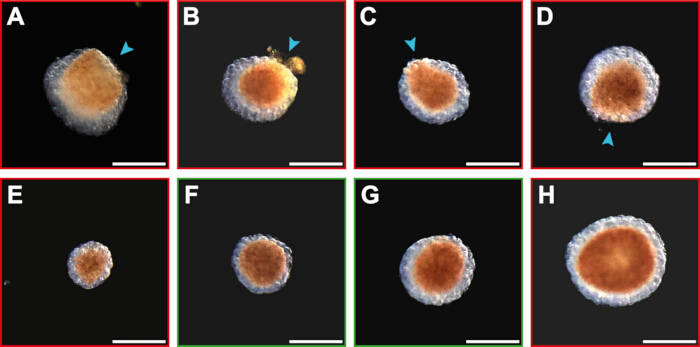
Şekil 2: Katlanmamış ve katlanmış kürelerin genel bakışı. (A-D) Açılmamış küreler, en az katlanmış olandan neredeyse tamamen katlanmış hale kadar sıralanır. Açılmış sferoidler, ektodermin endodermi kaplamadığı bir bölgeyle tanınır (mavi ok uçlarıyla belirtilir). (E) Çok küçük bir küre örneği. (F-G) Optimal boyutta katlanmış sferoidler (250-350 μm). (H) Çok büyük bir küre örneği. Görüntüler, Echo (RVL2-K) Revolve hibrit mikroskobu kullanılarak 4 kuyu cam tabanlı görüntüleme plakasında, ters modda 4.0x objektif ve renkli iletim ışık kamerası kullanılarak alındı. Ölçek çubukları: 250 μm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
2. Montaj stratejileri
NOT: Mikroskop düzeni ve deneysel tasarımın birleşimi, bir deney için en uygun montaj stratejisini belirler. Burada, çeşitli uygulamalar için kullanılabilecek çeşitli montaj tekniklerini anlatıyoruz.
- Agararoz kuyularında montaj (Şekil 3A)
- Karışımı tamamen çözünene kadar kaynatarak HM'de %1 agaroz hazırlayın.
NOT: %1 agaroz stoku önceden hazırlanabilir ve sıkı kapalı bir cam şişede 1 ay boyunca saklanabilir. Agarose'u 5 kattan fazla ısıtmamanızı tavsiye ediyoruz. Ancak, agaroz kuyuları deney günü hazırlanmalıdır. - Agaroz hâlâ sıvı iken, 4 kuyruklu cam tabanlı görüntüleme plakasının altını 2 mm kalınlığında bir tabakayla tamamen kaplayın.
NOT: Görüntüleme kurulumuna ve test edilecek durum sayısına bağlı olarak diğer görüntüleme plakaları da uygun olabilir. Bir tedavi içeren deneyler için, agarozu dengelediğinizden emin olun. Termostabil kimyasallar doğrudan agaroza karıştırılabilir. %2 agaroz çözeltisi yapın ve kaynadıktan sonra istenen kimyasalın 2 katı çözeltisiyle karıştırın. Agarozu normalde olduğu gibi 1x bir çözeltiyle kaplayın. Kimyasal termostabil değilse, görüntüleme plakasındaki agaroz hacmini dikkate alarak kimyasalın konsantrasyonunu ayarlayın ve bu çözeltiyi agarozu kapatmak için kullanın. - Agarose'u tamamen setlemesine bırakın. Sonra, agarozda kuyular oluşturun. Her kuyu arasında en az 10 mm agaroz bırakarak yapısal bütünlüğünü garanti altına alın.
- Pistonu basılı tutarken, P1000 pipetinin ucunu agaroza iterek görüntüleme plakasının altına değdirin.
NOT: Agararoz kuyusularının boyutu, örneğin farklı boyutta bir uç veya bir damga kullanılarak ayarlanabilir. Örneklerin hareket edecek kadar alanı olması önemlidir. - Pipeti düz yukarıda tutun ve görüntüleme plakasının alt kısmıyla hizalayın. Sonra, agarozu kesmek için pipetin ucunu oynatıp döndürün.
- Pipetin pistonu bırakın ve pipeti düz yukarı hareket ettirerek agarozun ucunu yavaşça çıkarın.
- Pistonu basılı tutarken, P1000 pipetinin ucunu agaroza iterek görüntüleme plakasının altına değdirin.
- Kuyu yapma sürecini yeterince kuyu oluşturulana kadar tekrarlayın. Pipet çok hızlı çıkarılırsa veya agaroz tamamen kesilmezse, kuyunun dibinde biraz agaroz kalır. Bu kuyuları kullanmaktan kaçının çünkü görüntü kalitesini etkiler.
- Agarozu ince bir HM tabakası ile kaplayın. Ortamın buharlaşmasını önlemek için, kapağı olan bir görüntüleme plakası kullanın.
- Agaroz kuyularında oluşmuş olabilecek hava kabarcıklarını P20 pipet ucu ile havaya dokunarak serbest bırakın.
- Hydra kürelerini tek tek görüntüleme plakasına taşıyın. Bir küre hemen bir kuyuya düşmezse, pipetle sferoidi nazikçe iterek onu bir kuyuya yönlendirin.
NOT: İki küre aynı kuyuya düşebilir. Her iki küreyi aspirasyonla çıkar ve tekrar monte etmeyi dene. Sferoidlerin yeniden aspirasyonu sferoidlere ve/veya agarose kuyusuna zarar verebileceğini unutmayın. Eğer böyle olursa, farklı kuyular ve yeni küreler kullanmaya devam et. - Örnekleri ters bir mikroskopta görsün (Şekil 4A).
- Karışımı tamamen çözünene kadar kaynatarak HM'de %1 agaroz hazırlayın.
- FEP kuyularına montaj (Şekil 3B)
- FEP kuyularından hava kabarcıklarını çıkarmak için kullanılacak özel cam pipetler hazırlayın (Ek Şekil 1).
- Bir cam Pasteur pipetini ucunun ucunun tutulabileceği bir yerde alevde ısıtın. Pipeti dengesiz ısıtmak için döndürmeye devam edin.
- Bardak yumuşamaya başladığında, pipeti alevden çıkarırken pipet ucunu hızla gerin.
- İnceltilmiş alanı kırarak yaklaşık 0,4-0,5 mm büyüklüğünde yeni bir pipet ucu oluşturun. Pipet ucunu hızla alevin içine dokundurarak köreltir; Bunun pipetin kapanmadığından emin olun.
- Cam Pasteur pipetini pipetin genişlediği yerde ısıtın. Pipeti döndürmeyin, pipet ucu sarkmaya başladığında alevden dışarı çıkarın. Pipeti yatay tutun, L-şeklinde sertleşene kadar.
- FEP folyosunu özel alüminyum kalıplar üzerinde vakum termoformla FEP odalarıoluşturun 6. Kalıpların boyutları farklı örnek boyutlarına veya mikroskop odalarına göre uyarlanabilir. Hydra sferoidleri için 0,5 mm çapında kuyular en uygun olur.
- FEP folyosunu 15 x 15 cm boyutlarında levhalara kesin. FEP folyosunu termoform makinesinin içinde sıkıştırın ve 8 dakika ısıtın.
- Alüminyum kalıpları folyonun altına yerleştirin. Vakumda, folyoyu kalıpların etrafına 30 saniye boyunca şekillendirin.
- Termoform FEP folyosundan odaları manuel olarak kesin.
- FEP odasını konserve havayla tozsuz hale getirin. FEP odasını HM ile doldurun.
NOT: Genellikle, FEP odalarında kapak olmaz. Bu, görüntüleme sırasında ortamın bir kısmının buharlaşacağı anlamına gelir. Ortamın buharlaşması sorun yaratacaksa, kapatılabilen bir oda tasarlayın - Önceden hazırlanmış cam pipetlerle kuyulardan hava kabarcıklarını boşaltın. Pipetin ucuyla hava kabarcıklarını kuyudan dışarı itmek için bir kepçe hareketi kullanın.
- Tüm kuyular baloncuklardan arındıktan sonra, Hydra sferoidlerini teker teker FEP odasına taşıyın. Bir küre kuyuya düşmezse, pipetle onu it.
NOT: Eğer iki küre aynı kuyuya düşerse, her ikisini de pipet aspirasyonuyla çıkarıp yeniden monte edin. FEP kuyularının tasarımı, görüntüleme için hangi tür mikroskobun kullanılacağını belirler. Genel olarak, bir veya birden fazla yatay konumlanmış tespit hedefi olan mikroskoplar uygundur (Şekil 4B).
- FEP kuyularından hava kabarcıklarını çıkarmak için kullanılacak özel cam pipetler hazırlayın (Ek Şekil 1).
- Cam kapillyarlarda agaroz gömülü montaj (Şekil 3C)
- HM'de %1 düşük erime noktasına sahip agaroz karışımını tamamen çözünene kadar kaynatarak hazırlayın. 1 mL sıvı agarozu mikrosantrifüj tüpüne aktarın.
NOT: %1 düşük erime noktasına sahip agaroz stoku önceden hazırlanabilir ve sıkı kapalı bir cam şişede 1 ay boyunca saklanabilir. Gerekirse, agaroz 37 °C'de tutularak sıvı halde tutulabilir. Ancak, örnekler eklenir eklenmez agarozu aktif olarak ısıtmayın. Bu aşamada agarozu tedavi (bkz. Protokol adımı 2.1.2) veya floresan boncuklarla takviye etmeyi düşünün. Boncuklar çoklu görüntü yeniden yapılandırması için kullanılabilir. - 2-4 küre agaroza hareket ettir. Bir piston çubuğunu cam bir kapillere tamamen yerleştirin; Piston çubuğu sıkıca oturmalı.
- Kapillerin ucunu agaroza yerleştirin ve piston çubuğunu yavaşça yukarı çekerek agarozu kapiler içine çekin. Sferoidler olmadan biraz agaroz aspirasyon yapmaya başlayın, sonra durmadan agaroza gömülü sferoidleri kapillere yükleyin.
NOT: En iyi görüntüleme sonuçları için bireysel sferoidler iyi ayrılmış ve agaroz kolonunun alt kısmında konumlandırılmalıdır (Şekil 3C).
- HM'de %1 düşük erime noktasına sahip agaroz karışımını tamamen çözünene kadar kaynatarak hazırlayın. 1 mL sıvı agarozu mikrosantrifüj tüpüne aktarın.
- Agarozdan kapilleri çıkarın ve dışını mendil kağıdıyla temizleyin. Kapilleri yatay tutun ve agaroz sertleşene kadar döndürün; Bu, sferoidlerin agarose sütununun ortasında kalmasına yardımcı olur.
- Agaroz dolu kapillyarları HM'ye yerleştirerek örneklerin nemli kalmasını sağlayın. Cam kapillyarlara monte edilen örnekler, bir veya birden fazla yatay konumlanmış tespit hedefi bulunan bir mikroskopla görüntülenmelidir (Şekil 4C).
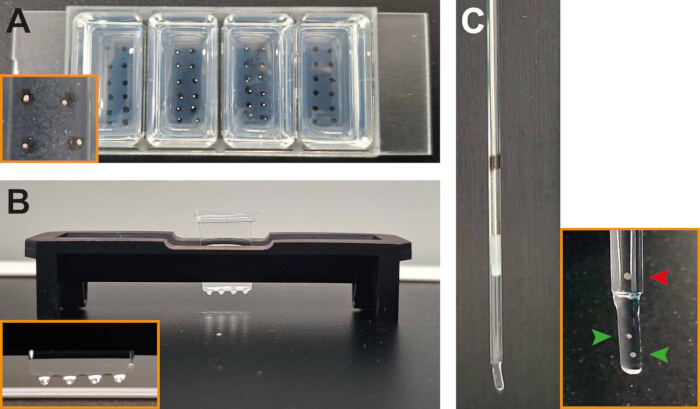
Şekil 3: Canlı görüntüleme için Hydra sferoidlerinin montajı. (A) Agarose kuyusu, ortasında iki odalı ve (dış odalı) olmayan küreler. (B) FEP kuyularına monte edilmiş sferoidler. (C) Agaroza gömülü ve cam bir kapiler içinde monte edilmiş sferoidler. Görüntüleme için, agaroz sütunu cam kapillerden hafifçe dışa itilir. Bu nedenle, küreler agaroz sütunun (yeşil ok uçları) altına yakın konumlandırılmalı, ancak iyi ayrılmış kalmalıdır. Alttan çok uzakta bulunan sferoidler (kırmızı ok ucu) etkili şekilde görüntülenemez. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
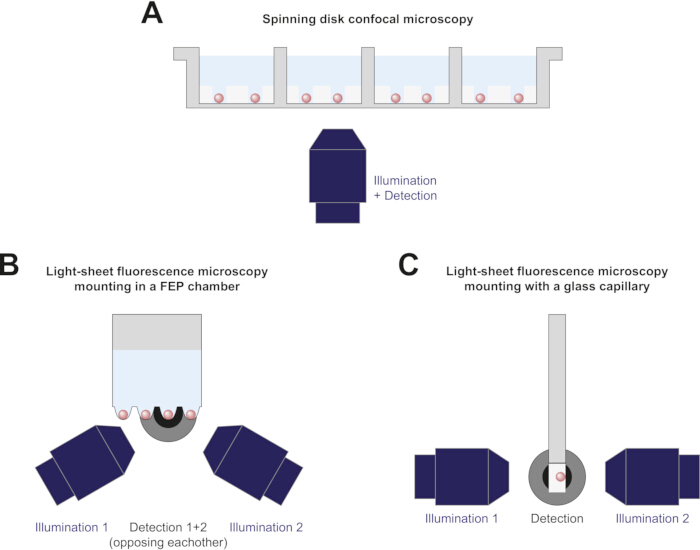
Şekil 4: Tanımlanan montaj stratejilerine uygun görüntüleme kurulumlarının şematik diyagramları. (A) Agaroz kuyularına monte edilmiş ve ters dönen disk konfokal mikroskopunda görüntülenen sferoidler. (B) FEP odasına monte edilmiş ve çok kuyu görüntülemeye uygun ışık tabakası floresan mikroskobu kullanılarak görüntülenensferoidler 6. Açıklık için, tespit hedefi 1'in karşısında konumlanmış ikinci tespit hedefi gösterilmemiştir. (C) Agaroza gömülü ve cam bir kapiller içinde ışık tabakası floresans mikroskopisi için (B)'ye kıyasla alternatif bir konfigürasyona sahip bir mikroskop kullanılarak monte edilmiş bir sferoid. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
3. Dönen disk konfokal mikroskopisi
- Örnekleri, dönen disk ünitesi ile donatılmış ters bir mikroskopta görüntüleyin. Mikroskop odasının sıcaklığını 18-21 °C olarak ayarlayın. Mikroskop soğutulamazsa, odayı soğutun.
- Tüm örneği kapsayan bir görüş alanına sahip bir hedef seçin. Agararoz kuyularına monte edilen örnekler için, görüş alanı ideal olarak tüm kuyuyu kapsamalıdır.
NOT: Kuru bir nesnel kullanımı tercih edilir, özellikle birden fazla örnekle geçiş veri setleri için. - Numune tutucusunu mikroskop aşamasına yerleştirin. Iletim ışığı açın ve pozlama süresini ayarlayın.
- Numunede bulunan floroforlar için lazer dalga boyunu, lazer gücü ve pozlama süresini seçin. Fototoksisite riskini azaltmak için lazer gücü ve pozlama süresinin mümkün olduğunca düşük ama iyi bir sinyal-gürültü oranı elde edecek kadar yüksek bir kombinasyon seçin.
NOT: Canlı örnekler görüntüleme sırasında önemli ölçüde hareket edebilir. Mümkün olduğunda, iki kamera kullanarak aynı anda floresans ve iletim ışığı veya çift lazer floresansı elde edin. İkiden fazla kanal görüntüleniyorsa, kesin örtüşmelerin en önemli olduğu kanalların eşzamanlı olarak alınmasına öncelik verin. - Tüm örnekleri bulun ve birden fazla görüntüleme pozisyonu olarak ayarlayın. Her örnek için, hedefe en yakın düzlemden başlayıp ilk odak dışı düzlemde biten bir z-yığını oluşturun. Hydra sferoidleri için 2 μm adım ölçüsü önerilir.
NOT: Bir z-stack oluşturmak her zaman gerekli değildir. Örneğin, yenilenen Hydra sferoidlerinin salınım davranışı incelenirken, örneklerin ekvator düzlemine odaklanan tek bir düzlem yeterlidir. Hydra örnekleri agaroz kuyusunun dibine doğru şekilde battığında ve uygun bir hedef seçildiğinde, bu düzlem hedefin çalışma mesafesinde olmalıdır. - Zaman geçişi parametrelerini ayarlayın. Her 10 dakikada bir görüntüleme ile 60-70 saatlik bir zaman, Hydra sferoidlerinin tam yenilenmesini görüntülemek için uygundur. Görüntülemeye başlayın.
4. Işık tabakası floresans mikroskopisi
- Örnekleri, yatay konumlanmış tespit hedefleriyle ışık tabakası mikroskobunda görüntüleyin.
- Başlamadan önce, aydınlatma hedefleri tarafından oluşturulan ışık tabakasını hizala. Mikroskop odasının sıcaklığını 18-21 °C olarak ayarlayın. Mikroskop soğutulamazsa, odayı soğutun.
- Tam örneği görüş alanına sığdırabilecek bir tespit hedefi seçin. Örnekler hareket edecek yer açtığında, bunu karşılayan bir tespit hedefi seçin.
- Numune tutucusunu mikroskopa yerleştirin. Numuneler cam bir kapiller içine monte edilmişse, pistonu aşağıya doğru iterek numuneler camdan çıkana kadar sadece agaroz üzerinden görüntü alınabilir (Şekil 3C).
- Mikroskop ayarlarını, iletim ışık, floresans, çoklu pozisyonlar ve zaman geçişi için (dönen disk konfokal mikroskopi) bölüm 3'te açıklandığı şekilde ayarlayın.
- Mikroskop birden fazla tespit hedefiyle donatılmamışsa, örneği birden fazla açıdan tespit etmek için çoklu görüş algılama kurun. Bir z-yığını içinde örneklerin yarısından fazlası tespit edilebildiğinde, 180° açı ile ayrılan iki görüş yeterlidir. Alternatif olarak, üç ila beş görünüm kullanın.
- Uygun bir adım boyutuyla z-stack kurun, Hydra sferoidleri için 2 μm adım boyutu önerilir. z-stack örneği tamamen kaplamalıdır. FEP kuyruklarında serbestçe hareket eden örnekler görüntülenirken, tüm kuyuyu kapsayan bir z-yığını oluşturun. Görüntülemeye başlayın.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Hem dönen disk konfokal mikroskopisi (SDCM) hem de ışık tabakası floresan mikroskopisi (LSFM) kullanarak Hydra sferoidlerinin yenilenmesi için uzun vadeli zaman geçişli veri setleri başarıyla ürettik. Her iki görüntüleme düzeninde de rejenerasyon normal şekilde gerçekleşti: sferoidler simetrisini bozdu, uzadı ve 3 gün içinde dokunaçlar ile bir ayak geliştirdi (Şekil 5A, Şekil 6A, Ek Video 1 ve Ek Video 2
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Hem SDCM hem de LSFM, yenilenen Hydra sferoidlerinin uzun vadeli zaman geçişli veri setleri üretmek için oldukça uygundur. Her tekniğin dayandığı optik prensipler farklıdır ve bu nedenle benzersiz avantajlar ve sınırlamalar sunarlar (Tablo 2). SDCM, örnekin tam, yüksek çözünürlüklü görünümü gerekmediğinde tercih edilir. Tek bir deneyde birden fazla örnek görüntülenebilir, bu da ilaç tedavileri gibi farklı durumların test edilmesinde özellikle faydalı olur. Ayrıc...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarlar, çıkar çatışmaları olmadığını belirtirler.
Teşekkürler
FMI İleri Görüntüleme ve Mikroskopi Tesisi'nden Laure Plantard'a değerli katkıları için teşekkür etmek isteriz. Bu çalışma, Novartis Araştırma Vakfı tarafından desteklenmiştir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 20×/0.8 Plan-Apochromat objektif | Zeiss | 440640-9903-000 | Spinning disk konfokal mikroskobu için |
| 20x/1.0 W Plan-Apochromat su daldırma objektifi | Zeiss | 421452-9700-000 | Zeiss Lightsheet 7'de tespit objektifi olarak kullanılır |
| FEP hazne montajı için 3D baskılı tutucu | özel yapım | ||
| 4 kuyu cam tabanlı görüntüleme plakası (#1.5H) | Ibidi | 80427 | |
| Agaroz | Carl Roth | 3810.4 | |
| FEP hazne için alüminyum kalıp | özel yapım | ||
| Kalsiyum klorür | Sigma-Aldrich | C4901 | |
| Konserve hava | Durable | POWERCLEAN STANDARD 400 | |
| Hücre kültür plakası (6 cm) | Thermo Fisher Scientific | 150288 | |
| D-(+)-glukoz | Sigma-Aldrich | G8769 | |
| FEP folyo (127 µm kalınlığında) | Adtech Polymer Engineering | ||
| FluoSpheres karboksilat modifiye (0.2 µm, koyu kırmızı) | Thermo Fisher Scientific | F8807 | |
| Cam kılcal damar | Brand | 701904 | |
| Cam pastör pipeti (150 mm) | VWR | 612-1701 | |
| Hydra vulgaris | |||
| Görüntüleme yazılımı | Visitron | VisiView | Spinning disk konfokal mikroskobu için |
| Ters ışık mikroskobu | Zeiss | Axio observer 7 | Spinning disk konfokal mikroskobu için |
| Işık tabakası mikroskobu | Leica | Viventis Deep LS2 | |
| Işık tabakası mikroskobu | Zeiss | Lightsheet 7 | |
| Düşük erime noktalı Agaroz | Thermo Fisher Scientific | R0801 | |
| Magnezyum klorür | Sigma-Aldrich | M8266 | |
| Magnezyum sülfat | Sigma-Aldrich | M2643 | |
| Mikro skalpel | pfm medical | 200300745 | |
| Pipet balonu | |||
| Pistonlu çubuk transferpettor | Brand | 701932 | |
| Potasyum klorür | Sigma-Aldrich | P9333 | |
| Güvenlik Bunsen brülörü | INTEGRA Biosciences | FIREBOY plus | |
| sCMOS kameralar | Photometrics | Prime 95B | Spinning disk konfokal mikroskobu için |
| Sodyum bikarbonat | Fluka Analytical, Sigma-Aldrich | 71630 | |
| Sodyum sitrat dihidrat | Sigma-Aldrich | W302600 | |
| Sodyum pirüvat | Sigma-Aldrich | P2256 | |
| Spinning disk konfokal tarama ünitesi (50 µm deliği) | Yokogawa | CSU-W1 | Spinning disk konfokal mikroskobu için |
| Stereoskop | Leica | M80 | |
| TES | Sigma-Aldrich | T1375 | |
| Termoformer | Yuyao Jintai Machine Factory | Jintai JT-18 | |
| Doku kültür plakası (10 cm) | VWR | 734-2321 | |
| Tris-HCl tamponu | Roche Diagnostics | 10812846001 |
Kaynaklar
- Bode, P. M., Bode, H. R. Formation of pattern in regenerating tissue pieces of hydra attenuata: I. Head-body proportion regulation. Dev Biol. 78 (2), 484-496 (1980).
- Fütterer, C., Colombo, C., Jülicher, F., Ott, A. Morphogenetic oscillations during symmetry breaking of regenerating hydra vulgaris cells. Europhys Lett. 64 (1), 137(2003).
- Weevers, S. L., et al. Mechanochemical patterning localizes the organizer of a luminal epithelium. Sci Adv. 11 (26), eadu2286(2025).
- Oreopoulos, J., Berman, R., Browne, M. Chapter 9 - Spinning-disk confocal microscopy: present technology and future trends. Meth Cell Biol. 123, 153-175 (2014).
- Stelzer, E. H. K., et al. Light sheet fluorescence microscopy. Nat Rev Meth Primers. 1 (1), 73(2021).
- Moos, F., et al. Open-top multisample dual-view light-sheet microscope for live imaging of large multicellular systems. Nat Meth. 21 (5), 798-803 (2024).
- Soriano, J., Colombo, C., Ott, A. Hydra molecular network reaches criticality at the symmetry-breaking axis-defining moment. Phys Rev Lett. 97 (25), 258102(2006).
- Livshits, A., Shani-Zerbib, L., Maroudas-Sacks, Y., Braun, E., Keren, K. Structural inheritance of the actin cytoskeletal organization determines the body axis in regenerating hydra. Cell Rep. 18 (6), 1410-1421 (2017).
- Hanson, A., et al. Automatic monitoring of neural activity with single-cell resolution in behaving hydra. Sc Rep. 14 (1), 5083(2024).
- Escobar, A., et al. Terminal differentiation precedes functional circuit integration in the peduncle neurons in regenerating hydra vulgaris. Neural Dev. 19 (1), 18(2024).
- Ferenc, J., Tsiairis, C. D. Studying Mechanical Oscillations During Whole-Body Regeneration in Hydra. Whole-Body Regenerat. 2450, 619-633 (2022).
- Bossert, P., Galliot, B. How to use hydra as a model system to teach biology in the classroom. Int J Dev Biol. 56 (6-8), 637-652 (2012).
- Jemielita, M., Taormina, M. J., Delaurier, A., Kimmel, C. B., Parthasarathy, R. Comparing phototoxicity during the development of a zebrafish craniofacial bone using confocal and light sheet fluorescence microscopy techniques. J Biophotonics. 6 (11-12), 920-928 (2013).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 1700003(2017).
- Ravichandran, Y., Vogg, M., Kruse, K., Pearce, D. J. G., Roux, A. Topology changes of hydra define actin orientation defects as organizers of morphogenesis. Sci Adv. 11 (3), eadr9855(2025).
- Maroudas-Sacks, Y., Garion, L., Suganthan, S., Popović, M., Keren, K. Confinement modulates axial patterning in regenerating hydra. PRX Life. 2 (4), 043007(2024).
- Bailles, A., et al. Anisotropic stretch biases the self-organization of actin fibers in multicellular hydra aggregates. Proc Natl Acad Sci. 122 (32), e2423437122(2025).
- Luu, P., Fraser, S. E., Schneider, F. More than double the fun with two-photon excitation microscopy. Comm Biol. 7 (1), 364(2024).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
