Bu protokol, birincil T hücrelerinin yetiştirilmesi için temel adımları tanımlar; bunların izolasyonu, aktivasyonu, genişlemesi ve mRNA elektroporasyonu ile geçici transfeksiyonu dahildir. Ayrıca, fenotip, aktivasyon belirteçleri, canlılık ve kimerik antijen reseptörü (CAR) ekspresyonunun akış sitometrik analizi için bir iş akışı ve antikor paneli önerilmektedir.
Yöntem makalesi
Birincil insan T hücrelerinin izolasyonu, yetiştirilmesi ve geçici transfeksiyonu için kimerik antijen reseptörü (CAR) T hücreleri üretmek
Bu makalede
Özet
Özet
Kimerik antijen reseptör (CAR) T hücrelerinin etkinliği ve gücünü değerlendirmek için, birincil insan T hücrelerinin izole edilmesi, aktive edilmesi, genişletilmesi, karakterizasyonu ve genetik mühendisliği yapılması gereklidir. Yaygın T hücre hatlarına kıyasla, birincil hücreler oldukça değişken oldukları, T hücresi aracılı öldürme yapabildikleri ve farklılaşabildikleri için daha gerçekçi bir model sistemi sağlayabilirler. Burada, primer T hücrelerinin yetiştirilmesi için temel adımların tüm adımlarını adım adım bir protokol sunuyoruz; bunların kan ürünlerinden izolasyonu, aktivasyonu, in vitro genleşmesi ve geçici transfeksiyon dahildir. İki farklı reaktifle aktivasyon sırasında birincil T hücrelerinin genleşme kinetiği ve farklılaşmasındaki farklılıkları tanımlıyor ve T hücresi fenotipi ile aktivasyon durumu için akış sitometrik analizi için bir antikor paneli sağlıyoruz. İnsan T hücrelerinin mRNA ile elektroporasyonu için ayrıntılı talimatlar sunuyoruz; mRNA bir CAR kodlayır ve CAR ekspresyon kinetiklerinin zaman içinde değerlendirilmesini sağlarız. Bu protokol, CAR T hücrelerinin aşağı akış potentisi ve etkinliği testleri için ideal zaman noktaları ve farklı miktarda mRNA'nın sinyal yoğunluğu üzerindeki etkisi hakkında öneriler sunar. Bu yöntemin geçici doğası göz önüne alındığında, birçok CAR yapısını paralel olarak test etmek ve karşılaştırmak için hızlı ve kolay uygulanabilir bir fırsat sunar.
Giriş
Birincil insan T hücreleri, T hücre biyolojisini incelemek ve hücre tedavilerinin geliştirilmesi ve değerlendirilmesi için fizyolojik olarak ilgili ve çok yönlü bir modeldir; bunlar arasında CAR mühendisliği de vardır. Ölümsüzleştirilmiş hücre hatlarının aksine, sağlıklı bağışçılardan türetilen T hücreleri, in vivo T hücrelerinin fonksiyonel çeşitliliğini, aktivasyon durumlarını, fenotipik çeşitliliğini ve sinyal dinamiklerini yakından yansıtır; böylece bağışıklık yanıtları ve terapötik performansın daha doğru bir temsilisağlanır 1,2. Ayrıca, lenfoblastik lösemiden türetilen en yaygın kullanılan Jurkat T hücre hattı, hücre hatlarında yaygın bir olgu olan uzun süreli kültürde genomik istikrarsızlık gösterdiği bildirilmiştir. 3 Raporlayıcı hücrehatları 4 dahil olmak üzere T hücre hatları, erken tarama için değerli araçlar olabilir ve hızlı bir okuma imkanı sağlarken, hastalardan alınan primer T hücrelerinin kullanımı nihai uygulamayı daha yakından yansıtır. Ancak, hasta kaynaklı T hücrelerinin sınırlı bulunabilirliği ve kalitesinin düşük olması, özellikle preklinik ürün geliştirmenin erken aşamalarında uygulanabilirliklerini sıklıkla kısıtlamaktadır 5,6,7. Sağlıklı donörlerden alınan hücrelerin kullanılması, hastalıkla ilişkili bağışıklık değişiklikleri ve önceki tedavilerin getirdiği değişkenliği daha da en aza indirir ve birden fazla bağışçı arasında T hücresi fonksiyonu, aktivasyonu ve transgen ifadesinin tekrarlanabilir değerlendirilmesini sağlar.
Birincil T hücrelerinin mevcut olması nedeniyle, birincil T hücrelerinin izolasyonu, aktivasyonu ve genişlemesi protokolleri, genetik manipülasyon ve fonksiyonel testler için kritik ön koşullardır. Yaygın aktivasyon stratejileri, antikorlarla kaplanmış manyetik boncuklar, T hücresi agonistleri içeren polimerik reaktifler veya çözünür antikor formülasyonları kullanır. Genellikle, aktivasyon reaktifleri CD3 kompleksi üzerinden fizyolojik T hücresi reseptörü (TCR) aktivasyonunu ve CD28 üzerinden birlikte uyarıcı sinyalleri taklit eder; bu da sadeceCD3 8 üzerinden yapılan aktivasyondan daha güçlü bir aktivasyona benzer. CD3/28 boncuklarıyla aktivasyon, aktivasyon şiddetinin ve boncuk-hücre oranının hassas kontrolüne olanak tanır. İlk uyarılma aşamasından sonra, boncuklar ya çıkarılabilir ya da sürekli aktivasyon için kültürde tutulabilir. T hücreleri genellikle hücre büyümesi yavaşlamadan önce üç ila dört hafta hızla genişler. Buna karşılık, TransAct kolloidal polimerik bir matris içerir ve fazla reaktif, santrifüjleme ve süpernatantın değişimiyle kolayca çıkarılabilir. Bu nedenle, kültürde homojen aktivasyonu mümkün kılan ve CD3/28 boncuklarına kıyasla daha düşük uyaranla T hücresi aktivasyonuna benzeyen bir alternatif sunar. Ancak, proliferasyon yaklaşık iki hafta boyunca indüklenir ve daha uzun genleşme süreleri için yeniden uyarılma gereklidir. Aktivasyon reaktifiyle ilk T hücresi aktivasyonundan sonra, T hücreleri bir ila dört hafta in vitro kültürlenir ve genişletilir, ardından deneylerde kullanılabilirler. Özellikle, aktivasyon reaktifinin türü,sitokinler 9,10,11 seçimi ve genleşme süresi mutlak T hücre sayılarını, fenotipini ve aktivasyon durumunu etkiler. Genellikle, reaktif konsantrasyonu, kültür yoğunluğu, sitokin takviyesi ve genleşme süresi gibi optimal koşullar başlangıçta test edilmeli ve aktivasyonla indüklenen hücre ölümü veya T hücresi tükenmesine neden olmadan sağlam proliferasyon elde edilebilmek için ampirik olarak belirlenmelidir. Burada, aktivasyon reaktifi seçimi ve deneylerin zamanlaması kararlarını desteklemek için iki farklı aktivasyon protokolünün yan yana karşılaştırmasını ve birincil insan T hücrelerinin farklılaşma ve aktivasyon profili üzerindeki etkilerini veriyoruz.
Ayrıca, T hücrelerinin fenotipik bileşimi ve aktivasyon durumunu analiz etmek için faydalı bir akış sitometrik paneli öneriyoruz ve deneysel planlamayı destekliyor. Birincil T hücrelerinin genetik modifikasyonu için, haberci ribonüklein asidin (mRNA) elektroporasyonu kullanılarak geçici transfeksiyon, viral transdüksiyona güvenli, verimli ve esnek biralternatiftir 12. Lentiviral vektörler transgenlerin kararlı ve uzun vadeli ekspresyonunu mümkün kılarken, karmaşık biyogüvenlik önlemleri gerektirirler, konak genomuna entegrasyon gerektirir ve entegrasyon yerine bağlı olarak değişken ifadeye yol açabilirler. Ayrıca, lentiviral süpernatantların üretimi, ardından T hücresi transdüksiyonu ve transdüksiyon edilen hücrelerin seçimi zaman alıcıdır. Buna karşılık, mRNA elektroporasyonu, hedef genlerin genomik entegrasyon veya viral bileşenler olmadan hızlı ve geçici ifadesini sağlar, böylece düzenleyici yükü azaltır ve yapıların hızlı ve yinelemeli testlerini mümkün kılar. Bu özellikle, birden fazla CAR adayı taranıp değerlendirildiği erken geliştirme aşamalarında avantajlıdır. Son yayınlarda, mRNA ile transfeksiyon terapötik bir platformolarak incelenmektedir 13,14,15. mRNA16 ile geçici transfeksiyonun, özellikle biyogüvenlik seviyesi 2 (BSL-2) ortamında lentiviral çalışmaları yapma imkanı olmayan laboratuvarlar için uygulanması kolay bir yaklaşım olduğunu öneriyoruz. Lentiviral transdüksiyondan önceki farklı aktivasyon rejimlerinin yan yana karşılaştırması başka yerlerdemevcuttur 17.
Bu protokol, birincil insan T hücrelerinin anti-CD3/28 boncukları veya TransAct ile aktivasyon için izolasyon, aktivasyon, yetiştirme, genişleme ve geçici CAR ekspresyonu için mRNA elektroporasyonu kullanılarak transfeksiyon işlemlerini açıklar. Özetlenen iş akışı, sitotoksisite testleri, fenotipik karakterizasyon veya benimsenen T hücre tedavilerinin in vitro modellenmesi gibi sonraki uygulamalar için uygun fonksiyonel CAR T hücrelerinin tekrarlanabilir üretimini sağlar.
Protokol
Bu protokol, Viyana Tıp Üniversitesi'nin etik yönergelerini takip etmektedir. Etik öneriler, Viyana Tıp Üniversitesi etik komitesi tarafından onaylandı (1087/2025 ve 1198/2025).
1. Kan ürünlerinden primer T hücrelerinin izolyasyonu
NOT: Başlangıç materyali tam kan, aferez ürünü veya lökosit indirgeme odaları olabilir. İşleme kadar numuneyi 4 °C'de tutun ve izolasyona mümkün olan en erken zamanda, ancak örnek toplandıktan en geç 24 saat içinde başlayın. T hücresi izolasyonu için negatif ve pozitif seçim dahil olmak üzere farklı izolasyon stratejileri mevcuttur. 1.1 ve 1.2. bölümler, T hücresi izolasyonu için seçenekler sunan iki farklı protokol tanıtmaktadır. Kan ürünlerinin işlemesi biyolojik bir güvenlik dolabında yapılmalı, işlem sırasında örnek oda sıcaklığında (RT) tutulmalıdır.
- T hücrelerinin yoğunluk gradyanlı santrifüjleme kullanılarak negatif seçilimle izolasyonu
- Kit talimatlarına göre, her ml numune başına gerekli miktarda antikor kokteyli ekleyin. RT'de verilen süre için kuluçka yapın. Önerilen insan T hücresi zenginleştirme kiti için: Numune başına 50 μL antikor kokteyli kullanın ve RT'de 20 dakika kuluçka yapın (örneğin, 5 mL numune için 250 μL antikor kokteyli ekleyin).
NOT: Bu özel kit için, başarılı T hücresi izolasyonu için minimum miktarda kırmızı kan hücresi (RBC) bulunmalıdır (önerilen minimum oran çekirdekli hücre başına 100 RBC'dir). Bu genellikle tam kan veya lökosit indirgeme odaları başlangıç materyali olarak kullanıldığında geçerlidir. Aferez ürünü kullanımı için, bu izolasyon stratejisi başarılı olmayabilir çünkü RBC oranı genellikle çok düşüktür. Bu nedenle, periferik kan mononükleer hücrelerinin (PBMC) önceden izolasyonu ve ardından bölüm 1.2'de açıklandığı gibi T hücresi izolasyonu adımı önerilir. - Uygun bir tüpte yoğunluk ortamı (Ficoll, Pancoll veya benzeri) hazırlayın. 3 mL'nin altındaki örnek hacimleri için, 3 mL yoğunluk ortamı (15 mL'lik santrifüjasyon tüpünde) kullanın. 4 mL ve üzeri örnek hacimleri için, 15 mL yoğunluk ortamı (50 mL santrifüj tüpünde) kullanın.
- Kuluçka süresinin sonunda, örneği %2 fetal sığır serumu (FBS) içeren eşit hacimde fosfatlı tuzlu (PBS) ile seyreldin ve pipetle karıştırın. Bu, 1:2 seyreltme anlamına gelir (örneğin, 3 mL örneği 3 mL PBS ile %2 FBS ile seyreltirin). Sulandırılmış örneği, serolojik pipet ve pipetleme yardımcısı kullanarak yoğunluk ortamının üzerine dikkatlice katmanlayın, pipetleme hızı minimuma ayarlandı.
- Tüpü 45° açıda tutarak yoğunluk ortamının yüzey alanını artırın ve katmanı destekleyin.
- Örneği 1.200 x g RT ile 20 dakika boyunca santrifüj yapın. Santrifüjün frenini kapatın veya minimuma ayarlayın. Santrifüjlemeden sonra, yoğunluk ortamı ile plazmanın arayüzü arasında beyaz bir tabaka görünür olmalıdır. Bu beyaz bulutlu halka istenen T hücrelerini içerir.
- T hücrelerini, steril transfer pipeti veya 2 mL serolojik pipet kullanarak dikkatlice toplayarak ve yeni bir tüpe aktararak hasat edin. Yoğunluk ortamı veya plazmanın taşınmaması için katmanları mümkün olduğunca az rahatsız edin.
- 1.3 bölümüne devam edin.
- Kit talimatlarına göre, her ml numune başına gerekli miktarda antikor kokteyli ekleyin. RT'de verilen süre için kuluçka yapın. Önerilen insan T hücresi zenginleştirme kiti için: Numune başına 50 μL antikor kokteyli kullanın ve RT'de 20 dakika kuluçka yapın (örneğin, 5 mL numune için 250 μL antikor kokteyli ekleyin).
- T hücrelerinin yerçekimi akış kiti kullanılarak pozitif seçilimle izole edilmesi
- Numuneden PBMC'leri çıkarmak için yoğunluk gradyanı izolasyon adımı yapın: 1.1.2. bölüme göre yoğunluk ortamı hazırlayın. Örneği eşit hacimde PBS ile %2 FBS ile seyreltin. Bu, 1:2 oranında bir seyreltme anlamına gelir (örneğin, 3 mL numuneyi 3 mL PBS + %2 FBS ile seyreltirin).
- Sulandırılmış örneği, serolojik pipet ve pipetleme yardımcısı kullanarak yoğunluk ortamının üzerine dikkatlice katmanlayın, pipetleme hızı minimuma ayarlandı. Tüpü 45° açıda tutarak yoğunluk ortamının yüzey alanını artırın ve katmanı destekleyin.
- 400 x g, RT sıcaklığında, kırma kapalı veya minimuma ayarlanmış halde 30 dakika boyunca santrifüj yapın. Santrifüjlemeden sonra, yoğunluk ortamı ile plazmanın arayüzünde beyaz bir tabaka görünür olmalıdır. Bu beyaz bulutlu halka, yoğunlukları RBC'lerin yoğunluğundan daha düşük olduğu için PBMC'leri içerir.
- PBMC'leri dikkatlice beyaz bulutlu tabakayı toplayıp taze bir tüpe aktararak hasat edin. Bu aşamada steril transfer pipeti veya 2 mL serolojik pipet kullanın ve katmanları mümkün olduğunca az rahatsız edin.
- Topladığı hücreleri yıkayın: %2 FBS ile 20 ml PBS ekleyin. Hücreleri sayın ve toplam hücre sayısını hesaplayın. 300 x g, 4 °C sıcaklıkta, kırıcı açık şekilde 10 dakika boyunca santrifüj yapın. Bundan sonra hücreleri buzda tutun ve soğutulmuş reaktiflerle çalışın.
- Üst yüzeyden pipetle çıkar. Aşağıdaki hesaplamalar 1 x 10⁷ hücreye kadar kullanılır ve buna göre ölçeklendirilebilir. Hücre pelletini %0,5 sığır serum albümini (BSA) ve 2 mM etilen diamintetraasetik asit (EDTA) ile 80 μL PBS içinde yeniden süspansiyona alın.
- 10 μL CD4 mikroboncukları ile 10 μL CD8 mikroboncukları karıştırın. Boncuk karışımını yeniden askıya alınmış PBMC'lere ekleyin. İyice karıştırın ve 4 °C'de 15 dakika kuluçka yapın.
- Bu arada, yerçekimi akış sütununu uygun bir ayırma cihazının manyetik alanına yerleştirin. Kolonu 3 mL PBS ile BSA ve EDTA ile durulayarak hazırlayın.
- Kuluçka aşamasından sonra, hücreleri BSA ve EDTA ile birlikte 2 mL PBS ekleyerek yıkayın. Santrifüj 300 x g, 4 °C'de, 10 dakika boyunca. Üstten atılın ve BSA ile EDTA ile birlikte 500 μL PBS'ye 10⁸ hücreye kadar süzülür.
- Hücre askısını kolona uygulayın. Etiketlenmiş hücreler, manyetik ayırma cihazı tarafından kolonda tutulur. Akış bölüm etiketlenmemiş hücreler (CD4 ve CD8 çift negatif PBMC'ler) içerir ve istenirse toplanabilir. Kolonu 3 kez BSA ve EDTA ile 3 x 3 mL PBS ile durulayın. Sütun boşalır boş kalmaz yeni bir tampon ekleyin.
- Etiketlenmiş hücreleri elüasyon etmek için, manyetik ayırıcıdan yerçekimi akış kolonunu çıkarın ve çıkışını yeni bir toplama tüpünün üzerine yerleştirin. BSA ve EDTA içeren 5 mL PBS pipetini kolona koyun, ardından pistonu kolona sıkıca iterek hücreleri elüasyon edin. Bölüm 1.3 ile devam edin.
NOT: Manyetik antikor kitleri pan T hücre kitleri olarak ve belirli T hücre alt kümeleri için mevcuttur ve pozitif veya negatif seçim kitleri olabilir. Her durumda, etiketlenmiş hücreler manyetik ayırma cihazı tarafından tutulur. Pozitif seçim için, T hücreleri (veya alt kümeleri) benzer antikorları aracılığıyla manyetik boncuklarla etiketlenir. Negatif seçim için, belirtilen T hücre popülasyonuna ait olmayan tüm hücreler manyetik boncuklarla etiketlenir. Bu nedenle T hücreleri akışta bulunur.
- İzole T hücrelerinin dondurulması
- T hücrelerini 20 mL PBS ile yıkamak, %2 FBS ile yıkamak. Santrifüj 300 x g, RT, 10 dakika boyunca. Kırma tekrar açılabilir. Üst yüzeyi at.
- Hücreleri 5-10 mL PBS ile %2 FBS ile yeniden süspansiyona alın. Hücreleri doğrudan yetiştirmek için kullanmak için 2.4. bölüme devam edin. Hücreleri dondurmak için aşağıdaki bölüme geçin.
NOT: İzole edilen T hücreleri hemen aktivasyon ve yetiştirme için kullanılırsa hücrelerin dondurulması gerekmez. - Yeniden askıya alınmış hücreleri sayın ve santrifüj 300 x g, 4 °C sıcaklıkta 10 dakika boyunca. Bu arada, dondurulacak hücre sayısını hesaplayın. Bir T hücresi aliquotu 5-20 x 106 hücre içermelidir. Etiketlenmiş kriyo-şişe ve dondurucu ortamı gerekli sayıda hazırlayın (bkz. Tablo 1).
- Santrifüjlemeden sonra, üst sıvıyı atıp kalan sıvıyı pipetleyin. Bundan sonra hızlı çalış.
- Her aliquot için hücre pelletini 1 mL önceden soğutmuş dondurma ortamında yeniden askıya alın (örneğin, beş aliquot hazırlanırsa, pelleti 5 mL dondurma ortamında tekrar süzülür). Her kriyo-şişeye 1 mL hücre süspansiyonu takın. Kryo-şişeleri hemen -80 °C'de dondurun.
NOT: Kontrollü bir hızda dondurmak önerilir. Bunu başarmak için uygun dondurma kapları kullanın. Hücreler, -80 °C'de donduktan sonra sıvı azota aktarın (örneğin, ertesi gün veya iki hafta içinde).
| Bileşen | Son yoğunlaşma |
| Dimetil Sülfoksit | %10 (v/v) |
| Fetal Sığır Serumu | %45 (v/v) |
| RPMI 1640 fenol kırmızıyla | %45 (v/v) |
Tablo 1: Dondurma ortamının bileşimi. Dondurma ortamı, dondurma ve depolama sırasında hücre bütünlüğünü ve canlılığını korumak için kullanılır.
2. Primer T hücrelerinin erimesi, aktivasyonu ve genişlemesi
- Tüm adımları steril çalışma koşullarında biyolojik bir güvenlik kabini kullanarak gerçekleştirin.
- Roswell Park Memorial Institute (RPMI) 1640 orta kısmını 37 °C'de katkı maddeleri olmadan ısıtarak 20 mL'yi santrifüj tüpüne aktarın. Tüpü hızla sıcak suya tabi tutarak, donmuş T hücrelerinin bir aliquotunu eritebilirsiniz. Kriyo-şişede hâlâ küçük bir buz topu görünürken çözülmeyi durdurun.
- Hücre süspansiyonuna hemen 1 mL önceden ısıtılmış RPMI ekleyin ve dikkatlice santrifüj tüpüne aktarın. Kriyo-şişesini 1 mL RPMI ile durulayın. Hücreleri kesme stresine maruz bırakacak ek yeniden süspansiyon adımlarından kaçının.
- Santrifüj hücrelerini 300 x g, RT ile 5 dakika boyunca koyun. Üst yüzeyi at. Hücre pelletini tam T hücreli ortamda yeniden süzülür. Tam T hücreli ortam, %10 FBS, %1 Penisillin/Streptomisin, 5 ng/mL Interleukin 7 (IL-7) ve 10 ng/mL Interleukin 15 (IL-15) içeren RPMI 1640'tan oluşur ( bkz. Tablo 2).
- Yeniden askıya alınmış hücreleri say. Tohum hücreleri, uygun bir kuyu plakasında tam T hücre ortamında, 1 x 10⁶ hücre/mL yoğunlukta. İlgili kılavuzda belirtildiği gibi gerekli miktarda aktivasyon reaktivi ekleyin. Örneğin, 1 x 10⁶ hücreyi aktive etmek için, 24 kuyu bir plakada 1 mL tam T hücre ortamında tohum hücreleri ekleyin. Ya 25 μL CD3/28 boncuk veya 10 μL TransAct reaktifi ekleyin.
NOT: Hücreler yeterince yoğun değilse (yani hücre sayısı 1 x 10⁶ hücre/mL'nin altındaysa), önceki koşullarla tekrar santrifüj yapın. Pelleti, uygun miktarda tam T hücresi ortamında yeniden süspansiyona alın ve 1 x 10⁶ hücre/mL yoğunluğa ulaşın. - Hücreleri, %5CO2 ortamında 37 °C sıcaklıkta, üç haftaya kadar kuluçka içinde. Her 2-3 günde bir hücreleri sayın ve yoğunluğu 0,3-0,5 x 10⁶ hücre/mL olarak taze tam T hücreli ortam ekleyerek ayarlayın. Hücre yoğunluğu, birincil T hücreleri yüksek yoğunlukta kültürlendiğinde üstel büyüme fazına geri dönmeyeceği için 1,5 x 10⁶ hücre/mL'yi aşmamalıdır.
NOT: Özellikle aktivasyondan sonraki ilk günlerde, makroskobik hücre kümeleri görülebilir (bkz. Şekil 2D). Bu beklenen bir durumdur, çünkü hücreler proliferasyon başlatıldığında aktivasyon reaktifinin etrafında kümelenir. Genellikle, hücreler aktivasyondan yaklaşık bir hafta sonra kullanıma hazır olur. Ancak zamanlama, deneysel kuruluma ve gerekli hücre sayısına bağlıdır. Biyolojik kopyalar için aktivasyondan sonra her zaman aynı aralıkta T hücrelerinin kullanılması önerilir (yani aktivasyondan 9-12 gün sonra).
| Bileşen | Son yoğunlaşma |
| Fetal Sığır Serumu | %10 (v/v) |
| Interleukin 15 (IL-15) | 10 ng/mL |
| Interleukin 7 (IL-7) | 5 ng/mL |
| Penisillin/Streptomisin 10.000 U/mL | %1 (v/v) |
| RPMI 1640 fenol kırmızıyla | NA |
Tablo 2: Tam T hücresi ortamının bileşimi. Aktivasyondan sonra birincil insan T hücrelerinin yetiştirilişinde kullanılan ortam.
3. Fenotip ve aktivasyon belirteçleri için boyama
- T hücrelerini say. Her boyama reaksiyonu için 0.1 x 10⁶ hücre kullanın. Gerekli hücre süspansiyon hacmini hesaplayın ve uygun bir polistiren yuvarlak tabanlı tüpe aktarın.
NOT: Gerekirse boyalı hücre sayısı en az 50.000 hücreye indirilebilir. Antikorlar azı dişleri fazlalığında olduğu sürece, gerekli miktardan fazla hücre boyamak mümkündür; daha öncetarif edildiği gibi 18,19. - Hücreleri doğrudan 1 mL boyama tamponu ekleyerek yıkayın; bu tampon %0,5 FBS içeren PBS'den oluşur. Santrifüj 300 x g, 4 °C'de, 5 dakika boyunca koyun. Bundan sonra hücreleri buzda tutun ve soğutulan reaktiflerle çalışın.
- Bu arada, Tablo 3'te açıklandığı gibi tüm tüpler için bir antikor master karışımı hazırlanın. Antikorları boyama tamponunda son konsantrasyona kadar seyreltirin. Boyama, tüp başına 50 μL hacimde yapılır. Örneğin, vortex ile iyi karıştırın.
NOT: Bu protokol, bölüm 6'da açıklanan CAR ifadesi için boyama gibi diğer boyama deneyleriyle birleştirilebilir. Canlı hücrelerin kapısına yardımcı olmak için canlı/ölü boyama eklenebilir. Bu durumda, diğer floroforlarla örtüşmesini önlemek için emisyon spektrumları buna göre seçilmelidir. - Santrifüjlemeden sonra, üst sıvıyı atıp kalan sıvıyı pipetleyin. Her peleti 50 μL antikor master karışımına yeniden süzülür.
- Tüpleri karanlıkta 4 °C sıcaklıkta en az 30 dakika kuluçka edin. Bu kuluçka aşaması birkaç saate kadar uzatılabilir.
- Hücreleri doğrudan boyama reaksiyonuna 1 mL boyama tamponu ekleyerek yıkayın. Santrifüj, 300 x g, 4 °C sıcaklıkta 5 dakika boyunca kullanın ve süpernatantı atın. Bu bölümü aynı şartlarla tekrarlayın. İkinci yıkama adımından sonra, süpernatantı atarak hücrelerin kurumasını önlemek için tüplerde az miktarda tampon bırakın.
- Lekelenmiş hücreleri ölçülüğe kadar pelletli ve buz üzerinde tutun. Pelleti ölçümden hemen önce 100 μL boyama tamponunda tekrar askıya alın.
NOT: Bu protokol, 5 mL yuvarlak tabanlı tüplerde yapılan boyama için optimize edilmiştir. 96 kuyu levhalarında boyama da biraz uyarlanmış bir protokol kullanılarak mümkündür. Plakaların çalışma hacmi daha düşük olduğundan, boyamadan önce iki adet 200 μL yıkama adımı önerilir. Eğer her kuyu başına 50 μL'den fazla hücre süspansiyonu tohumlanmışsa, pelet hücreleri ve üst yüzeyi atarak yıkama aşamalarına geçilmesine devam edin. Boyama ayrıca 50 μL kuyu başına yapılır. Boyamadan sonra, 200 μL boyama tamponu ile iki yerine üç yıkama adımı uygulanır. Santrifüjleme, yukarıda açıklanan aynı ayarlarla gerçekleştirilir.
| Lazer rengi | Lazer λ (nm) | Emisyon filtresi | Filtre aralığı (nm) | Floresan boya | Antijen | Son seyreltme | İşaret tipi |
| Violet | 405 | 450/45 | 427.5–472.5 | VioBlue | CD45 | 1:100 | Pan lökosit |
| Violet | 405 | 525/40 | 505–545 | VioGreen | CD69 | 1:50 | Aktivasyon |
| Violet | 405 | 610/20 | 600–620 | Vio Bright V600 | CD45RA | 1:100 | Fenotip |
| Mavi | 488 | 525/40 | 500–545 | FITC | CD8 | 1:100 | Fenotip |
| Mavi | 488 | 690/50 | 665–715 | PerCP–Vio 700 | CD154 | 1:50 | Aktivasyon |
| Sarı/yeşil | 561 | 585/42 | 564–606 | PE | CD134 | 1:50 | Aktivasyon |
| Sarı/yeşil | 561 | 675/30 | 660–690 | PE–Vio 670 | CD3 | 1:100 | Pan T Hücresi |
| Sarı/yeşil | 561 | 780/60 | 750–810 | PE–Vio 770 | CD25 | 1:50 | Aktivasyon |
| Kırmızı | 638 | 660/20 | 650–670 | APC | CD137 | 1:50 | Aktivasyon |
| Kırmızı | 638 | 712/25 | 699.5–724.5 | Vio Bright R720 | CD62L | 1:100 | Fenotip |
| Kırmızı | 638 | 780/60 | 750–810 | APC–Vio 770 | CD4 | 1:100 | Fenotip |
Tablo 3: Birincil T hücresi ekspresyonunun fenotip ve aktivasyon belirteçlerinin analizi için antikor paneli ve önerilen floroforların genel görünümü. Bu deneyi yapmak için en az 4 lazerli bir akış sitometresi ve ilgili filtre kurulumu gereklidir. Cihaz kurulumu farklıysa, floroforlar buna göre ayarlanmalıdır.
4. CAR kodlayan DNA'nın in vitro transkripsiyonu ve mRNA üretmek
- mRNA'ya in vitro transkripsiyon (IVT) için uygun bir DNA şablonu tasarlayın. T7 RNA polimerazı için bir T7 promotörü, bir Kozak dizisi, bir başlangıç kodonu, bir sinyal peptid dizisi, istenen CAR dizisi ve bir stop kodonu ekleyin (Şekil 1).
NOT: Kozak dizisi, protein çevirisinin başlatılması için kritik olan bir tanıma motifidir ve ribozom tarafından bir başlangıç kodonunun doğru montajını destekler. Sinyal peptidi, Golgi'de CAR'ın doğru şekilde işlenmesi ve plazma zarına dahil edilmesi için gereklidir. CAR ifadesini tespit etmek için, CAR'ın hücre dışı kısmına (örneğin, DYKDDDDK etiketi veya MAP etiketi) bir etiket eklemek faydalıdır. Bazı CAR'lar, florofor ile konjuge edilmiş çözünür eşdeğer antijenleri veya scFv linker domain gibi diğer yaygın yapılara karşı antikorlar (örneğin, anti-G4S linker antikor veya anti-Whitlow linker antikor) kullanılarak da tespit edilebilir. - DNA'yı, CAR yapısının yanındaki primerler, T7 promotoru dahil olmak üzere, polimeraz zincir reaksiyonu (PCR) ile amplifikasyon yapın. IVT için 1 μg CAR-DNA gereklidir. PCR ürününün doğru uzunluğunu, analitik agararoz jel elektroforezi yaparak doğrulayın. IVT'ye geçmeden önce PCR ürününü kolon arıtma ile PCR ve DNA temizleme kiti ile arındırın. DNA -20 °C'de depolanabilir.
NOT: Polimerazın daha iyi bağlanmasını sağlamak için transkript öncesi ve sonrası primer bölgelere 5-10 rastgele nukleotid eklemek faydalı olabilir. IVT için büyük miktarda DNA gerektiğinden, PCR reaksiyonunun hacmi buna göre artırılabilir. - Poliadenillenmiş mRNA üretmek için bir poliadenillenmiş (A) kuyruk adımı içeren bir IVT kiti kullanın. IVT işlemi biyolojik bir güvenlik dolabında yapın ve yüzeyleri dezenfektanla iyice temizleyin. IVT işlemi yapmak için kit talimatlarını izleyin.
NOT: Transkripsiyon adımını birkaç saate kadar uzatmak mRNA verimini artırabilir. Poliadenilasyon adımının süresi, örnekler arasında sabit tutulmalıdır, çünkü bu, poli (A) kuyruğunun uzunluğunu doğrudan etkiler. Bu da mRNA kararlılığını ve in vivo20 verimliliğini etkileyebilir. - mRNA'yı kolon tabanlı RNA temizleme kiti kullanarak arındırın ve uygun bir cihazla arıtılmış mRNA konsantrasyonunu belirleyin.
NOT: Transkribe edilen mRNA'nın kalitesini değerlendirmenin birkaç yolu vardır; bunlara poli (A) kuyruk adımından önce ve sonra analitik jel elektroforezi ve mRNA konsantrasyonunu belirlemek için emilim oranına dayalı yöntemler bulunur. Önerilen A260/230 oranı 2.0-2.2'dir; 1.8'in altındaki değerler, kirlenme ve ifade testlerinde potansiyel olarak kötü performansı gösterir. mRNA modifikasyonlarının ve elektroporasyon öncesi arındırmanın önemi başkabir yerde 21,22,23 olarak tanımlanmıştır. - Aliquot 3-5 μg saflaştırılmış mRNA (bir elektroporasyon için deneylerde kullanılacak son mRNA miktarı) ve aliquotları -80 °C'de depolayın. Tekrarlayan donma-erime döngülerinden kaçının.

Şekil 1: T hücresi transfeksiyonu için mRNA üretimi için gereken DNA şablon bileşenlerinin şematik temsili. IVT için şablon DNA, bir T7 promotoru, Kozak dizisi, bir başlangıç kodonu ve ardından proteinin hücre dışı uzaya salgılanmasını sağlayan bir sinyal peptit, istenen CAR dizisi ve bir stop kodonu içermelidir. Kısaltmalar; mRNA = haberci ribonüklein asidi; DNA = deoksiribonüklein asit; CAR = kimerik antijen reseptörü; IVT = in vitro transkripsiyon. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
5. Birincil T hücrelerinin mRNA elektroporasyonu ile geçici transfeksiyonu
- Transfeksiyondan bir gün önce, T hücrelerini tam T hücreli ortamda 0,3 x 10⁶ hücre/mL yoğunlukta seyreltin ( bkz. Tablo 2). Hücreler, transfeksiyon gününde (yani 1 x 10⁶ hücre/mL'nin altında yoğunlukta) üstel büyüme aşamasında olmalıdır ki verimli CAR ekspresyonu yapılabilsin.
- Transfeksiyon günü, gerekli tüm malzemeleri 37 °C'de önceden ısıtın.
- T hücrelerini sayın ve gerekli hacmi hesaplayın. Her CAR-mRNA için 1-5 x 10⁶ hücre kullanın.
NOT: Her zaman "MOCK" transfeksiyon (yani transfeksiyon işlemini geçiren, ancak mRNA eklemeden yapılan T hücreleri) dahil edilmesi tavsiye edilir. Bu hücreler ayrıca boyama ve deneyler için negatif kontrol olarak da kullanılabilir. Bir deneyde hücre sayısını sabit tutun. - T hücresi süspansiyonunun gerekli hacmini konik bir santrifüj tüpüne aktarın. Santrifüj 300 x g, RT ile 5 dakika boyunca boyunca. Üst yüzeyi at. Aşağıdaki bölümlerdeki tüm santrifüj adımları bu koşullar altında tekrarlanır.
NOT: Eğer gerekli hacim tek bir konik santrifüj tüpünün kapasitesini aşarsa, iki veya daha fazla tüp arasında eşit parçalara bölünebilir. Bu durumda, tüm peletleri toplam 20 mL RPMI ortamında yeniden askıya alın ve ilk yıkama aşamasında (bölüm 5.6) biriktirin. - Elektroporasyon sonrası T hücrelerinin geri kazanılması için uygun bir kuyu plakasında tam T hücre ortamı hazırlanır.
NOT: Hesaplama için şu hususları kullanın: Elektroporasyondan sonra hücreler yaklaşık 0,5-1,0 x 10⁶ hücre/mL yoğunlukta tohumlanmalıdır. Elektroporasyon sırasında veya sonrasında hücrelerin yaklaşık üçte biri ila yarısı ölür. Örneğin, elektroporasyon başına 2 x 10⁶ hücre kullanılırsa, en az 1 x 10⁶ hücre kalması beklenmektedir. Gerekli hücre yoğunluğuna ulaşmak için 2.0 mL tam T hücre ortamı (12 kuyululu bir plakada) kullanın. T hücre ortamını içeren plakayı elektroporasyon yapılana kadar 37 °C'de önceden ısıtın. - İlk yıkama adımını 20 mL RPMI ile fenol kırmızı ile ve takviye kullanmadan yapın. Hücrelerin üzerine pipet RPMI yapın, 300 x g ile santrifüj yapın, RT 5 dakika boyunca kullanın ve üst yüzeyi atın.
- İkinci yıkama adımını fenol kırmızısı ve takviye olmadan 20 mL RPMI ile yapın.
NOT: Elektroporasyon için birkaç donörün T hücreleri kullanılırsa, hücreler paralel olarak hazırlanabilir, 5.8. bölüme kadar yapılabilir. Son yıkama adımını yapmak için sadece bir T hücre partisi kullanın (bölüm 5.8). Diğer hücreleri süpernatantı atmadan peletlenmiş bırakın ve ilk elektroporasyon turu bittiğinde son yıkama adımına geçin. - Üçüncü yıkama adımını yukarıda açıklandığı gibi 20 mL azaltılmış serum ortamı ile yapın.
- Son santrifüj aşamasında, dondurucudan gerekli tüm mRNA aliquotlarını toplayıp buz üzerinde tutun. Elektroporasyon küvetlerini ve plakayı önceden ısıtılmış malzemeyle etiketleyin.
- Elektroporasyon cihazında koşulları kurun. Burada Gen Pulser Xcell toplam sistemi kullanılır. Birincil T hücreleri için protokol ayarları şu olmalıdır:
Kare Dalga Protokolü: Voltaj: 500 V, darbe sayısı: 1, Darbe uzunluğu: 5 ms, Darbe aralığı: 0, Küvet çapı: 4 mm
NOT: Bu protokol birincil T hücreleri için optimize edilmiştir. Diğer hücre tipleri ise özellikle darbe uzunluğu gibi ayarların uyarlanmasını gerektirebilir. - Süpernatantı kalan sıvıyı peleti rahatsız etmeden pipetleyerek iyice atın. Hücre peletini elektroporasyon başına 100 μL azaltılmış serum ortamında yeniden askıya alın (örneğin, beş elektroporasyon yapılırsa, pellet toplam 500 μL hacimde yeniden süzülür).
- Elektroporasyon başına 100 μL T hücresi süspansiyonu ve 3-5 μg mRNA kullanın. Aynı anda sadece bir elektroporasyon hazırlayın. T hücresi süspansiyonunu mRNA içeren tüpe ekleyin, nazikçe karıştırın. Pipetleri yukarı aşağı kullanmaktan kaçının. Bundan sonra hızlı bir şekilde çalış.
NOT: Eklenen mRNA'nın hacmi 10 μL'yi geçmemelidir. Gerekirse mRNA miktarı ayarlanabilir. CAR veya deneyleri karşılaştırırken, her elektroporasyon için her zaman aynı sayıda hücre ve mRNA kullanın. Bu önemlidir, çünkü mRNA miktarı doğrudan CAR ifade seviyeleriyle bağlantılıdır ( bkz. Şekil 5). - mRNA/T hücre karışımını elektroporasyon küvetine aktarın. Süspansiyonun küvetin altını örttüğünden emin olun. Yukarı aşağı pipet yapma.
- mRNA/T hücre karışımını içeren küveti hızla elektroporasyon cihazına aktarın ve 5.11. bölümde hazırlanan ayarlarla elektroporasyon yapın.
- Elektroporasyondan sonra, T hücrelerini önceden ısıtılmış tam T hücre ortamında dikkatlice geri kazanın; kuyu plakasından küvete 100 μL ortam eklenerek hücreler tekrar plakaya aktarılır. Küveti 100 μL orta sıvıyla durulayın.
NOT: Hücreler, elektroporasyon sonrası kesme stresine karşı hassastır. Tekrar tekrar askıya alma adımlarından kaçının. - Tüm mRNA yapıları için 5.12 ile 5.15 arasındaki bölümleri tekrarlayın.
- Transfekte edilen T hücrelerini %5CO2 ile 37 °C'de inkübe edin. Eğer başka bir T hücre partisi hazırlanırsa, şimdi bu partiyle 5.8 bölümüne devam edin.
- İlgili deneyi 24 saat içinde gerçekleştirin.
NOT: CAR ekspresyonu elektroporasyondan 3-6 saat sonra tespit edilebilir. Zirve ifade seviyeleri ve kinetik mRNA yapısına bağlı olabilir ve ön deneylerde test edilmelidir. Olası aşağı akım potensi testlerini tanımlayan ayrıntılı protokoller, örneğin CAR T hücresi sitotoksisitesi veya sitokin salgısı seviyelerinin tümör hedef hücrelerle birlikte kültür üzerine analizi gibi,başka yerlerde mevcuttur.
6. Elektroporasyon sonrası CAR ifadesinin analizi
- Elektroporasyondan 6-24 saat sonra T hücrelerini yeniden süspansiyon ve say. Her boyama reaksiyonu için 50.000-100.000 hücre kullanın. Gerekli hücre süspansiyon hacmini uygun polistiren yuvarlak tabanlı bir tüpe aktarın. Aşağıdaki bölümler biyolojik güvenlik kabini dışında yapılabilir.
- Hücreleri 1 mL boyama tamponu ekleyerek yıkayabilirsiniz; bu tampon %0,5 FBS içeren PBS'den oluşur. Santrifüj 300 x g, 4 °C'de, 5 dakika boyunca koyun. Bundan sonra hücreleri buzda tutun ve soğutulan reaktiflerle çalışın.
- Boyama panelinde kullanılan tüm antikorlarla master bir karışım hazırlayın. CAR algılamasını sağlayan bir antikor ekleyin (örneğin, DYKDDDDK-etiketi gibi entegre bir peptid-etiketi aracılığıyla). Antikorları önerildiği gibi 50 μL nihai boyama hacminde seyreldin (örneğin, 1:50 seyreltme elde etmek için, her tüp için 49 μL tampona 1 μL antikor eklenir).
NOT: CAR ekspresyonu için boyama işlemi yalnızca CAR algılayıcı antikor ile veya fenotipik ve aktivasyon belirtisi boyama ile birleştirilebilir. Antikor ve konjuge florofor ayarlanabilir. Antikor ve/veya floroforlar değiş tokuş edilirken, ilgili uyarılma ve emisyon spektrumlarını göz önünde bulundurun. APC, eşzamanlı canlılık boyaması için önerilen 7-aminoaktinomisin D (7-AAD) boyası ile uyumludur. - Santrifüjlemeden sonra, hücre pelletini rahatsız etmeden kalan sıvıyı pipetleyerek süpernatantı iyice atabilirsiniz. Her peleti hazırlanmış antikor karışımının 50 μL'sinde yeniden askıya alın.
- Tüpleri karanlıkta 4 °C sıcaklıkta en az 30 dakika kuluçka edin. Bu kuluçka aşaması birkaç saate kadar uzatılabilir.
- Hücreleri doğrudan tüpe 1 mL boyama tamponu ekleyerek yıkayın. 300 x g, 4 °C'de 5 dakika boyunca santrifüj yapın ve kalan sıvıyı pipetleyerek süpernatantı iyice atabilirsiniz. Hücre pelletlerini tüp başına 100 μL boyama tamponunda yeniden askıya alın.
- Ölçüme başlamadan önce, tüplere 2 μL 7-AAD çözeltisi ekleyin ve iyi karıştırın. Karanlıkta RT'de 10 dakika kuluçka yapın. Hemen ölçüme geçin.
NOT: 7-AAD ile hücreleri 15 dakikadan fazla kuluçka edinmeyin, çünkü bu sonuçları çarpıtabilir. Homojen kuluçka süreleri elde etmek için, 7-AAD'yi sıralı veya toplu olarak eklemeyi düşünün. Bu protokol, 5 mL yuvarlak tabanlı tüplerde yapılan boyama için optimize edilmiştir. 96 kuyruklu plakalarda boyama işlemi de hafifçe değiştirilmiş bir protokol kullanılarak gerçekleştirilebilir. Plakaların çalışma hacmi daha düşük olduğundan, boyamadan önce 200 μL tampon içeren iki yıkama adımı önerilir. Eğer her kuyu başına 50 μL'den fazla hücre tohumlanıyorsa, hücreleri pellet edin ve yıkama aşamalarına geçmeden önce üst yüzeyi atın. Boyama ayrıca 50 μL kuyu başına yapılır. İnkubasyondan sonra, 200 μL boyama tamponu ile iki yıkama yapılsın. Santrifüjleme, yukarıda açıklanan aynı ayarlarla gerçekleştirilir.
Sonuçlar
Birincil insan T hücrelerinin aktivasyonu ve genişlemesi
Birincil T hücreleri 0. günde CD3/28 boncukları veya TransAct ile eritilip aktive edildi, 23 gün genişletildi ve her 2-3 günde bir sayıldı (Şekil 2A). Sayım günlerinde, hücre yoğunlukları 0,3-0,5 x 10⁶ hücre/mL olarak ayarlandı. 0/2/5/9/14/20 günlerinde, aktivasyon belirteçlerinin fenotipi ve ekspresyonu değerlendirmek için akış sitometrik analizinde T hücreleri kullanıldı. Aktivasyondan sonraki ilk hafta içinde, T hücreleri her iki aktivasyon reaktifiyle birlikte hızla çoğaldı ve genişledi (Şekil 2B), sonraki günlerde TransAct ile aktive edilen T hücrelerinde ise biraz daha düşük katlanma genişlemesi yaşandı (Şekil 2C). Özellikle, T hücrelerinin aktivasyonu mikroskobik analizle de görülebiliyordu; aktivasyon reaktiflerinin etrafında T hücresi kümeleri oluşuyordu (Şekil 2D).
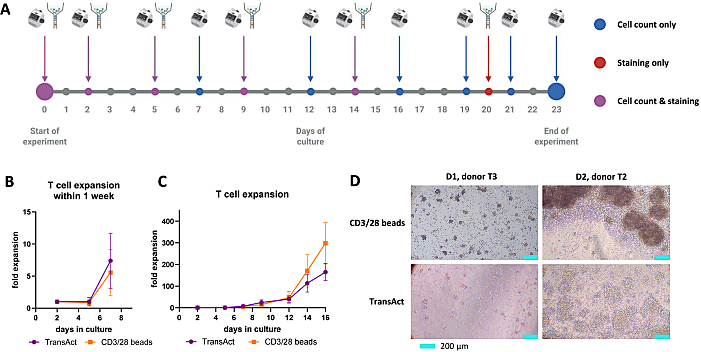
Şekil 2: İki farklı aktivasyon reaktifiyle birincil T hücrelerinin aktivasyonu ve genişlemesi. (A) Deneysel zaman çizelgesinin şematik temsili. Hücreler 0. günde CD3/28 boncukları veya TransAct ile aktive edildi ve 23 gün boyunca kültürlendi. Mavi noktalar hücrelerin sayıldığı günleri, kırmızı noktalar hücrelerin akış sitometrisiyle analiz edildiği günleri, mor noktalar ise her iki analizin de yapıldığı günleri gösterir. (B) ve (C) Kültürden sonraki ilk hafta (B) veya (C) içinde primer T hücrelerinin genişlemesi. Değerler, 4 (CD3/28 boncuk) veya 3 (TransAct) farklı sağlıklı T hücresi bağışçısının ortalama ± standart sapmasını gösterir. (D) Aktivasyondan sonraki 1. ve 2. günlerde görünür hücre kümelenmesi olan aktive T hücrelerinin temsil mikroskobik görüntüleri. Görüntüler ters mikroskopla çekildi. Cetvel 200 μm'ye karşılık gelir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
T hücresi fenotipinin boyalanması ve aktivasyon belirteçleri
Akış sitometrik analizi için aşağıdaki kapı stratejisi uygulandı (Şekil 3): Hücre kalıntıları ve boncukları çıkarmak için ilk kapı (FSC-Yükseklik vs. SSC-Yükseklik) uygulandı, ardından tek hücreler için kapı (FSC-Genişlik vs. SSC-Alan) uygulandı. CD3+ hücrelerinin oranı %98-100 aralığında olmalıdır. Daha fazla alt kapı ile CD4+ (yardımcı) T hücreleri ve CD8+ (sitotoksik) T hücrelerinin yüzdesi elde edildi; bunlar CD45RA ve CD62L belirteçleri kullanılarak farklı fenotipik T hücre alt kümeleri için daha fazla kapatıldı. CD3+ T hücreleri, aktivasyon belirteçlerinin (CD25/CD69/CD134/CD137/CD154) ekspresyonu açısından ek olarak analiz edildi.
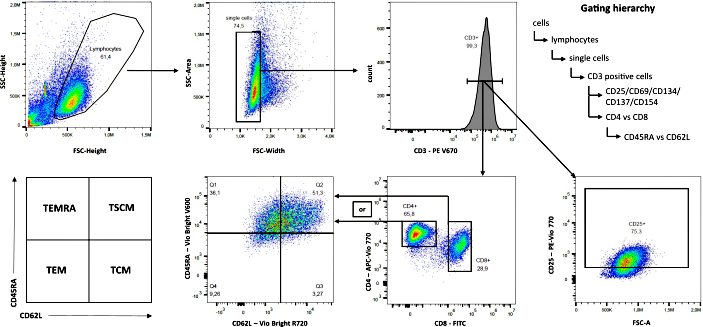
Şekil 3: Akış sitometrik analizi için kapı stratejisi. 5. günde CD3/28 boncuklarıyla aktive edilen bir T hücresi donörünün temsilci nokta grafikleri gösterilir (n = 4). Kısaltmalar; TEMRA = CD45RA'yı yeniden ifade eden T efektör bellek hücreleri; TSCM = kök hücre benzeri hafıza T hücreleri; TEM = efektör bellek T hücreleri; TCM = merkezi bellek T hücreleri. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
CD3/28 boncuklarla aktivasyondan sonra, CD4+ T hücrelerinin CD8+ T hücrelerine kıyasla oranı zamanla azaldı; 5. günde CD4+ T hücrelerinin %74,3'ü (± %7,4) bulundu; aktivasyondan sonraki 20. günde %14,6'ya (± %3,4) düştü. CD8+ T hücreleri 5. günde %20,7'den (%6,4± %20'ye (%82,4) (± %3,1) yükseldi (Şekil 4A). TransAct ile aktivasyondan sonra benzer eğilimler tespit edildi; 20. günde CD8+ T hücrelerinin oranı biraz daha düşük oldu (%72,5 ± %0,7). Bu nedenle, TransAct ile aktivasyondan sonra gözlemlenen biraz daha yavaş T hücresi genişlemesi, genleşme döneminde CD8+ oranının daha düşük ve CD4+ hücrelerinin daha yüksek yüzdesine karşılık geldi. T hücresinin fenotipik bileşimindeki farklar her iki aktivasyon reaktifinde de benzerdi (Şekil 4B). Ancak, CD45RA (TEMRA) yeniden ifade eden T efektör bellek hücrelerinin sıklıkları, CD8+ hücreler için CD4+ hücrelerine göre genel olarak daha yüksekti. Aynı şekilde, CD4+ T hücrelerinde merkezi hafıza T hücreleri (TCM) ve kök hücre benzeri bellek T hücreleri (TSCM) oranlarında daha yüksek oranlar bulundu (Şekil 4B).
CD134, T hücrelerinin eritilmesinden sonra zaten yukarı regülasyona sahip olan tek aktivasyon belirteciydi; %37,6 (%± %4,1) CD134+ T hücreleri CD3/28 boncuklarla aktive edildi ve %36,1 (±%4,4) %4,4 CD134+ T hücreleri TransAct ile aktive edilmiş T hücreleri için (Şekil 4C). Her iki aktivasyon stratejisinde de, CD25, CD69 ve CD134 2. güne kadar yüksek regulasyonda gerçekleşti. CD3/28 boncuklarında ise CD69 ve CD134 ifadesi 2. günde zirveye ulaşırken, CD25 5. günde zirveye ulaştı. Benzer sonuçlar TransAct ile aktifize edilmiş T hücreleri için de görüldü. CD134 ve CD154, hem CD3/28 boncukları hem de TransAct ile aktifleşmiş hücreler için yalnızca 14. günde yukarı regülasyon yapıldı. Genel olarak, gözlemlenen eğilimler iki aktivasyon reaktifi arasında çok benzerdi. Ancak, 14. gündeki CD69 ekspresyonu, CD3/28 ile aktive edilen T hücrelerinde TransAct muadillerine göre biraz daha yüksekti (%97,1 %± %0,9 ± %86,5 %5,1). Bu, CD3/28 boncukla aktive edilen hücrelerde görülen uzun süreli yüksek genleşme hızına karşılık gelir. Özetle, önerilen aktivasyon belirteç paneli, aktivasyondan sonra erken ve sonraki zaman noktalarında yukarı düzenlenen işaretleyicileri içerir; farklı aktivasyon belirteçleri arasında duyarlılık değişir, ancak genel olarak her iki aktivasyon reaktifi için benzer eğilimler vardır.
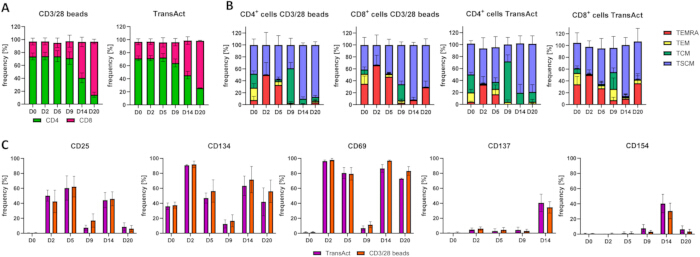
Şekil 4: 20 günlük bir yetiştirme süresinde farklı aktivasyon reaktifleriyle T hücresi fenotipi ve aktivasyon belirteci ekspresyonunun analizi. (A) CD3/28 boncukları (solda) veya TransAct (sağda) ile aktivasyondan sonra yetiştirme sırasında CD4+/CD8+ T hücrelerinin yüzdeleri. (B) CD3/28 boncukları (iki sol panel) veya TransAct (iki sağ panel) ile aktivasyondan sonra T hücresi farklılaşması, her biri CD4+ veya CD8+ hücreleri için. Fenotip, CD45RA ve CD62L belirteçleri kullanılarak değerlendirildi. TEMRA: CD45RA+ CD62L-, TEM: CD45RA- CD62L-, TCM: CD45RA-CD62L+, TSCM: CD45RA+ CD62L+. (C) CD3/28 boncukları veya TransAct ile aktivasyondan sonra ve genleşme döneminde aktivasyon belirteçlerinin ifadesi. Ebeveyn popülasyonu CD3+ T hücrelerinin frekansları [%] gösterilmiştir (ortalama 4 [CD3/28 boncuk] veya 3 farklı sağlıklı T hücre bağışçısının standart sapması ± ortalama). Kısaltmalar; TEMRA = CD45RA'yı yeniden ifade eden T efektör bellek hücreleri; TSCM = kök hücre benzeri hafıza T hücreleri; TEM = efektör bellek T hücreleri; TCM = merkezi bellek T hücreleri. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Birincil T hücrelerinin geçici transfeksiyonu ve CAR ekspresyonunun analizi
Birincil T hücreleri, aktivasyondan sonra 7. gün elektroporasyon yoluyla CD3/28 boncukları veya TransAct ile mRNA ile transfekte edildi. Bir şablon olarak, ikinci nesil CAR için kodlayan mRNA, kondroitin sülfat proteoglikan 4 (CSPG4) için CD28 ko-uyarıcı ve CD3ζ sinyal alanı ile kullanıldı. Akış-sitometrik algılamayı mümkün kılmak için bir DYKDDDDK-etiketi (bayrak etiketi) eklendi. T hücresi canlılığı ve CAR ekspresyonu elektroporasyondan 3, 6, 24 ve 48 saat sonra değerlendirildi. Boyama, protokol 6. bölümünde tanımlandığı gibi yapıldı.
CD3/28 boncuk ve TransAct ile aktive edilen T hücrelerinin canlılığı elektroporasyondan 3 saat sonra düşük olsa da, genel olarak transfekte edilen CAR T hücrelerinin canlılığı %51-85 arasında değişmiş ve iki aktivasyon stratejisi arasında anlamlı bir fark yaşamazmıştır (Şekil 5A). CAR, elektroporasyondan sonra bu erken noktada zaten tespit edilebiliyordu. CAR+ hücrelerinin yüzdesi zamanla azalsa da, CAR+ hücrelerinin en yüksek frekansı elektroporasyondan sonraki 24 saat içinde tespit edilebiliyordu (Şekil 5B, sol panel). Özellikle, sinyal yoğunluğu elektroporasyondan sonraki ilk 6 saat içinde stabildi ve sonrasında kademeli olarak azaldı (Şekil 5B, sağ panel). CAR ifadesi 48 saat sonra neredeyse yoktu; bu da hücre manipülasyonunun geçici doğasını ve aşağı akış testleri için erken zaman aralığı seçmenin önemini gösterdi. Bir donörün CAR ifadesi için temsil nokta grafikleri Şekil 5C'de gösterilmiştir. Her iki aktivasyon reaktifi için, CD4/CD8 oranı CAR ile MOCK transfekte edilmiş hücreler arasında farklı olmamıştır (Şekil 5D). Önceki sonuçlarımızla tutarlı olarak, CD3/28 boncuklarıyla aktive edilen T hücreleri, TransAct ile aktive edilen hücrelere göre CD8+ T hücrelerinin biraz daha yüksek bir sıklığına sahip olduğunu gösterdi. Fenotipik analiz için, büyük donör bağımlı varyasyonlar nedeniyle bir temsilci donör gösterilmiştir (Şekil 5E). Hem aktivasyon reaktifi hem de CD4/CD8 durumu T hücresi fenotipini etkilerken, CAR ekspresyonu MOCK transfekte edilen hücrelere kıyasla fenotipte değişiklik yapmaz.
mRNA konsantrasyonunun ifade seviyeleri üzerindeki etkisini değerlendirmek için, birincil T hücreleri, 0.1, 0.3, 1, 3 veya 6 μg mRNA kullanılarak mutant bir GFP (muGFP) için mRNA kodlayan mRNA ile transfekte edildi. GFP sinyali, elektroporasyondan 24 saat sonra akış sitometrisiyle ölçüldü. Beklendiği gibi, zaten 0.1 μg kadar az miktarda mRNA tespit edilebilir bir GFP sinyaline yol açtı ve mRNA miktarları arttıkça sinyal yoğunluğu kademeli olarak arttı. Deneylerimizde, 1 μg mRNA zaten doygunlaşmıştı ve daha büyük miktarlar (3 ve 6 μg mRNA) GFP sinyalinin artmasına yol açmadı (Şekil 5F). Bu, farklı CAR veya hedef antijen ekspresyon seviyelerinin etkisini test etmek için farklı miktarlarda mRNA kullanma olasılığını ortaya koymaktadır; bu da farklı CAR veya hedef antijen ifadeseviyeleri 28'in etkisini test etmek için faydalı olabilir.
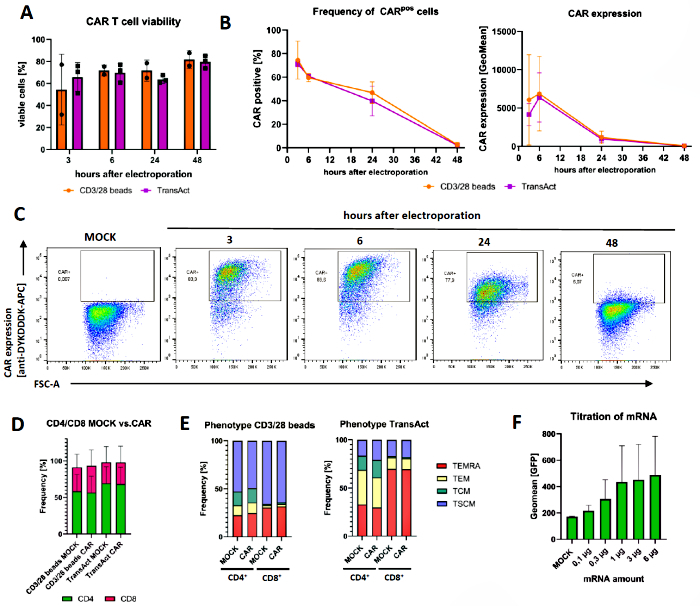
Şekil 5: CAR'ların ekspresyon kinetiği ve transfekte edilen CAR T hücrelerinin fenotip analizi. (A) CAR kodlayan mRNA ile elektroporasyon sonrası CAR T hücrelerinin yaşamı. 100 μL boyama tamponunda 2 μL 7-AAD, 10 dakikalık kuluçkadan sonra canlılığı değerlendirmek için kullanıldı. n = 2-3 bireysel bağışçı (B) CAR ekspresyonu için anti-DYKDDDDK antikoru ile boyama (APC ile konjuge edilmiş, 1:50 nihai seyreltme). Canlı hücrelerde kapı açıldıktan sonra, MOCK transfekte edilen kontrollerle (sol panel) karşılaştırıldığında CAR-pozitif hücrelerin yüzdesi veya tüm popülasyonun geometrik medyan floresans yoğunluğu (GeoMean, sağ panel) analiz edildi. Gösterilen, n = 3 bireysel bağışçının ortalamaları ± S.D. (C) (B)'den bir bağışçının temsil nokta grafikleri, CAR ifadesinin zaman içindeki kinetiklerini göstermektedir. (D) CD4+/CD8+ T hücrelerinin analizi ve MOCK ile CAR transfekte edilen T hücrelerinin ve elektroporasyondan 24 saat sonra iki farklı aktivasyon stratejisinin karşılaştırılması. Gösterilen ortalamalar n = 3 bireysel bağışçı ± S.D. (E) (B)'de elektroporasyondan 24 saat sonra MOCK transfekte edilen ve CAR transfekte edilen T hücrelerinin fenotipik analizidir. Gösterilen, n = 3 değerinde bir temsilci bağışçı gösterilmiştir. (F) Farklı mRNA miktarlarında elektroporasyondan 24 saat sonra muGFP ifadesinin analizi. Canlı hücreler için kapı belirleme, GFP için GeoMean nicelendirilmeden önce gerçekleştirilmiştir. Gösterilen n = 3 bağışçı ± S.D. Kısaltmaları; CAR = kimerik antijen reseptörü; mRNA = haberci ribonüklein asidi; 7-AAD = 7-aminoaktinomisin; RT = oda sıcaklığı; muGFP = mutant yeşil floresan protein; S.D. = standart sapma. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Tartışma
Birincil insan T hücrelerinin izolasyonu ve yetiştirilmesi, in vitro ve in vivo çalışmaların temelini oluşturur. Aktivasyon ve in vitro genişleme sırasında T hücrelerinin efektör benzeri bir fenotipe farklılaştığı ve sitokin takviyelerinin seçiminin bu farklılaşma kaderlerini güçlü şekilde etkilediği iyibilinmektedir 9. IL-7 ve IL-15 ile kültürlenen CAR T hücreleri, fare modellerinde IL-2 ile genişletilen T hücrelerine kıyasla daha iyi kalıcılık ve daha iyi anti-tümör aktivitesigöstermiştir 29. Bu nedenle, istenen fenotipe sahip T hücreleri elde etmek için hem aktivasyon reaktiflerinin hem de sitokin takviyelerinin seçimi önemlidir. Üç haftalık bir genleşme süresi boyunca T hücresi genişleme kinetiklerini, verimini ve CD4/CD8 oranını farklı şekilde etkileyen iki aktivasyon reaktivini (CD3/28 boncukları ve TransAct) karşılaştırdık. Genel olarak, CD3/28 boncuk aktivasyonu sonrası T hücreleri genişledi, TransAct aktivasyonuna göre daha yüksek CD8+ oranı ve CD4+ hücrelerinin daha düşük frekansları gösterdi. CD8⁺ T hücreleri tercihen efektör benzeri bir TEMRA fenotipine doğru farklılaştıkça, reaktif seçimi deneyin hedeflerine uygun olması gereken anahtar bir değişkendir. Fenotipik yüzey belirteçlerine ek olarak, aktivasyon belirteçlerinin yukarı regülasyonu T hücresi durumu ve efektör fonksiyonları hakkında bilgi sağlar. Hem CD25 hem de CD69 hassas aktivasyon belirteçleridir ve genellikle aktivasyondan sonraki erken zaman noktalarında yukarı regülasyonludur. Genellikle T hücrelerinin aktivasyonunu değerlendirmek için kullanılır, ayrıca doğal katil (NK)hücreleri gibi diğer hücre tiplerinin de 30,31,32. Buna karşılık, aktivasyon belirteçleri CD137 ve CD154, genişletilmiş T hücrelerinde daha düşük ekspresyon gösterdi ve bu da hedef hücrelerle birlikte kültür sırasında CAR T hücrelerinde spesifik yukarı regülasyonu değerlendirme potansiyellerini ortaya koydu. Özellikle, hedef hücrelerle (yani tümör hücreleri) birlikte kültür sırasında CAR T hücresi aktivitesini değerlendirmek için aktivasyon belirteç paneli uygulanırken, hedef hücreler olmasa bile T hücrelerinde bu belirteçlerin yüksek arka plan ekspresyonunu önlemek için aktivasyon belirteçlerinin dikkatli seçimi gereklidir.
Birincil T hücreleriyle çalışırken, genleşme ve farklılaşma profillerinin donörlere büyük ölçüde bağlı olduğunu bilmek gerekir. Ancak, T hücre izolasyonundan önce ilk numunenin 4 °C'de saklanması ve genel olarak kısa işlem süresi, izole edilen hücrelerin verimini ve kalitesini artırır. Hücre canlılığı, dondurma ve eritme aşamalarının süresinden etkilenir; çünkü dondurma ortamı dimetil sülfoksit (DMSO) gibi kriyoprojektanlar içerir. DMSO, donma sırasında hücresel yapıların korunması için kritik olsa da, oda sıcaklığında hücreler için toksiktir. Bu nedenle, DMSO'nun hızlı işlenmesi ve çözülme sonrası seyreltilmesi gereklidir. T hücreleri elektroporlandığında, hücreler en hassas olan elektrik darbesinden sonra olur; bu darbe, hücre duvarını mRNA için geçirgenlem hale getirmeyi amaçlar. Hücreleri dikkatli ele almak, ek kesme stresinden kaçınmak ve önceden ısıtılmış çözümlerle çalışmak, hücre iyileşmesini ve yaşamlılığını büyük ölçüde artırabilir. Yeni bir CAR yapısını test ederken, bilinen bir CAR veya GFP gibi bir raporlayıcı protein gibi pozitif kontrol mRNA'sı eklemek faydalı olabilir. Ayrıca, en azından MOCK transfekte edilmiş hücrelerin (yani mRNA olmadan elektroporlanmış hücrelerin) negatif kontrol olarak dahil edilmesi önerilir. Fonksiyonel testler için, farklı bir hedefe yönelik CAR için mRNA kodlama, CAR spesifik aktivasyonu değerlendirmek için kullanılabilir.
İfade kinetiği mRNA dizisine bağlı olabileceğinden, kinetiklerin bireysel olarak değerlendirilmesi, sonraki akış testlerinin iletilmesi için ideal zaman noktasını seçmek için değerli bir araçtır. Bu transfeksiyon yöntemi, birden fazla CAR yapısını paralel olarak hızlı ve kolay bir şekilde taramak amacıyla tasarlanmıştır. CAR'ın T hücre yüzeyinde ifade edildiği kısa zaman dilimi nedeniyle uzun vadeli testler yapılamaz. Ancak, ön transfeksiyon deneylerinden, istenirse viral transdüksiyona geçmek için en iyi CAR tasarımı belirlenebilir.
Son olarak, antikorlar veya onların konjuge floroforları deneysel düzene uymak için değiştirilebilir. Ancak, sonuçları güvenilir şekilde yorumlamak için floroforların ilgili uyarılma ve emisyon spektrumlarını dikkate almak çok önemlidir. Ayrıca, çok renkli bir panelin doğru telafini sağlamak için ön deneylerde tek bir antikorla tek boyama yapılabilir. Önerilen antikor paneli için spektral tazminat gerektirmemiş olsak da, panel değiştirildiğinde bir tazminat matrisi kurmak gerekebilir.
Sunulan IVT ve elektroporasyon protokolü, CAR yapılarını birincil insan T hücrelerine sokmak için viral transdüksiyona basit ve esnek bir alternatif sunar. Tamamen RNA tabanlı teslimata dayandığı için, BSL-2 altyapısına erişimi olmadan laboratuvarlarda gerçekleştirilebilir ve bu da CAR T hücresi araştırmaları için engeli önemli ölçüde azaltır. Viral transdüksiyon çok verimli ve ağırlıklı olarak CAR alanında kullanılsa da, genomik entegrasyonla ilgili güvenlik endişeleri (ikincil malignitelerin potansiyel nedeni) ve işçilik ile maliyet yoğun üretim ile birliktegelir 33,34. Ayrıca, CAR ifadesinin geçici doğası bu yaklaşımı birden fazla CAR tasarımının hızlı, paralel taraması içinözellikle uygun kılar ve araştırmacıların yapı performansını yüksek verimlilikte karşılaştırmalarını sağlar. Bu yöntemin dezavantajı, CAR ifadesinin sınırlı süresidir ve genellikleelektroporasyon 22,24,35,36 sonrasında yaklaşık 6-12 saat içinde zirve eder. Geçici transfeksiyonda, tekrarlayan uyarım testleri gibi uzun süreli kültürler CAR aşağı regulasyonu nedeniyle yapılamaz. Ancak, sınırlı sayıda aday olan kararlı ifade sistemlerine geçmeden önce mRNA elektroporasyonuna sahip en umut vadeden CAR yapı(lar)ını belirlemeyi öneriyoruz.
mRNA'nın birincil hücrelere elektroporasyonu, PBMC'ler, T hücreleri, B hücreleri, NK hücreleri ve dendritik hücreler gibi farklı hücre tiplerinde antijen gibi proteinleri ifade etmek için çok yönlü birteknolojidir 37. Özellikle, geçici CAR teslimatı için bir diğer olasılık lipid nanopartikülleridir (LNP)36,38; bu cihazlar, viral vektörler olmadan CAR kodlayan mRNA veya DNA'nın T hücrelerine taşınmasını sağlar ve entegrasyonsuz CAR ekspresyonunu sağlar. Buna karşılık, Sleeping Beauty transpozonsistemi 39,40,41 viral bileşenlerin gereksinimleri olmadan stabil entegrasyonu sağlar. T hücresi transfeksiyonu veya transdüksiyonunun en uygun seçimi, hedeflenen uygulama ve ölçeklenebilirlik ile üretim açısından dikkate alınan hususlara bağlıdır. mRNA tabanlı CAR T hücreleri, hematolojik ve katı maligniteler ile otoimmün hastalıklar dahil olmak üzere çeşitli farklı varlıklara karşı preklinik ve klinik çalışmalarda başarıyla kullanılmıştır 42,43,44. Geçici olarak ifade edilen CAR'lar, sınırlı yüzey ekspresyonu yan etkileri önleyebilir veya azaltabilir, istikrarlı CAR'lara kıyasla avantajlarsunar 25.
Özetle, bu iş akışı birincil T hücrelerinin izolasyonu, aktivasyonu, yetiştirilmesi, analizi ve transfeksiyonu için basit, adım adım bir protokol sunar ve böylece CAR T hücreleri üretilir. Uygulaması kolaydır, BSL-2 laboratuvar tesisleri gerektirmez ve standart moleküler biyoloji ve hücre kültürü tesislerine sahip laboratuvarlara kolayca entegre edilebilir.
Açıklamalar
Yazarlar çıkar çatışması olmadığını belirtmektedir.
Teşekkürler
Bu çalışma, Avusturya Bilim Fonu (FWF Project ESP 465-B) tarafından desteklenmiştir. Tıp Üniversitesi Çekirdek Tesisleri, Akış Sitometri Birimi'ni kabul ediyoruz. Tüm gönüllü sağlıklı bağışçılara katılımları ve örnek bağışları için hemşire ekibine destekleri için teşekkür ederiz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1.5 mL Microcentrifuge Tubes, High Performance | VWR | 525-1164 | |
| 12-well plates, flat bottom, TC-treated | VWR | 734-2324 | |
| 24-well plates, flat bottom, TC-treated | VWR | 734-2325 | |
| 6-well plates, flat bottom, TC-treated | VWR | 734-2323 | |
| 7-AAD staining solution | Miltenyi Biotec | 130-111-568 | |
| Anti-Flag DYKDDDDK Antibody, APC, REAfinity | Miltenyi Biotec | 130-119-584 | |
| BD FACSCanto II Clinical Flow Cytometry System | BD Biosciences | FACSCanto II | |
| Bovine Serum Albumin | Merck | A4503-10G | Gravity flow isolation için |
| CD134 (OX40) Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-126-048 | Konjugat: PE |
| CD137 (4-1BB) Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-110-764 | Konjugat: APC |
| CD154 (CD40L) Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-114-142 | Konjugat: PerCP-VIO 700 |
| CD25 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-114-541 | Konjugat: PE-Vio 770 |
| CD3 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-132-352 | Konjugat: PE-Vio 670 |
| CD4 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-113-223 | Konjugat: APC-Vio 770 |
| CD4 MicroBeads, human | Miltenyi Biotec | 130-045-101 | Gravity flow isolation için |
| CD45 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-110-775 | Konjugat: VioBlue |
| CD45RA Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-132-270 | Konjugat: Vio Bright V600 |
| CD62L Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-127-499 | Konjugat: Vio Bright R720 |
| CD69 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-112-800 | Konjugat: VioGreen |
| CD8 Antibody, anti-human, REAfinity | Miltenyi Biotec | 130-110-677 | Konjugat: FITC |
| CD8 MicroBeads, human | Miltenyi Biotec | 130-045-201 | Gravity flow isolation için |
| Cellstar 96 Well Suspension Culture Plate, U-bottom | Greiner Bio-one | 650 185 | |
| Centrifuge 5810 R | Eppendorf | 5811000015 | |
| CO2 incubator ICO150 | Memmert | ICO150 | |
| CoolNat Ice Machine | Ziegra Eismaschinen GmbH | ZBE 30-10 | |
| Corning CoolCell Freezer Container | Corning | CLS432000 | |
| Counting chamber, Bürker-Türk pattern, BLAUBRAND | Brand | 719520 | |
| CryoPure tubes, 2 mL, QuickSeal screw cap | Sarstedt | 72.380 | |
| CytoFLEX LX Flow Cytometer | Beckmann Coulter | C11185 | |
| Deoxynucleotide (dNTP) Solution Mix | New England Biolabs | N0447S | |
| Dimethyl sulfoxide (DMSO) Cell culture grade | AppliChem | A3672 | |
| DPBS, no calcium, no magnesium | Gibco | 14190-144 | |
| Dynabeads Human T-Activator CD3/CD28 | Gibco | 11131D | |
| Electroporation Cuvettes with 4 mm gap size, yellow cap | VWR | 732-1137 | |
| Eppendorf Research plus pipette, 0.1–2.5 µL | Eppendorf | 3123000012 | |
| Eppendorf Research plus pipette, 100–1000 µL | Eppendorf | 3123000063 | |
| Eppendorf Research plus pipette, 2–20 µL | Eppendorf | 3123000039 | |
| Eppendorf Research plus pipette, 20–200 µL | Eppendorf | 3123000055 | |
| Ethylenediaminetetraacetic acid (EDTA) | Merck | E6758-100G | Gravity flow isolation için |
| Falcon 15 mL PP Centrifuge Tube, Conical Bottom | Corning | 352196 | |
| Falcon 5 mL Round Bottom Polystyrene Test Tube | Corning | 352008 | |
| Falcon 50 mL PP Centrifuge Tube, Conical Bottom | Corning | 325098 | |
| Fetal Bovine Serum, Value FBS | Gibco | A52567-01 | |
| Ficoll PM 400 | Sigma-Aldrich | F4375-10G | Density gradient isolation için |
| Fisherbrand Sterile Graduated Transfer Pipets | Fisher Scientific | 13469108 | |
| Gene Pulser Xcell Total System | BioRad | 1652660 | PC Module ve CE Module ile |
| HiScribe T7 ARCA mRNA Kit (with tailing) | New England Biolabs | E2060S | |
| Human IL-15, research grade | Miltenyi Biotec | 130-093-955 | |
| Human IL-7, research grade | Miltenyi Biotec | 130-095-367 | |
| Integra Biosciences Corp PIPETBOY acu 2 pipet aid | Fisher Scientific | NC0085685 | |
| LE Agarose | Biozym | 840004 | |
| LS Columns | Miltenyi Biotec | 130-042-401 | Gravity flow isolation için |
| Microplate, 96 well, PS, V-bottom, clear, non-binding | Greiner Bio-one | 651901 | |
| Monarch RNA Cleanup Kit (50 μg) | New England Biolabs | T2040S | |
| Monarch Spin PCR & DNA Cleanup Kit | New England Biolabs | T1130S | |
Kaynaklar
- Bartelt, R. R., Cruz-Orcutt, N., Collins, M., Houtman, J. C. Comparison of T cell receptor-induced proximal signaling and downstream functions in immortalized and primary T cells. PLoS One. 4 (5), e5430(2009).
- Smeets, R. L., et al. Molecular pathway profiling of T lymphocyte signal transduction pathways; Th1 and Th2 genomic fingerprints are defined by TCR and CD28-mediated signaling. BMC Immunol. 13 (12), (2012).
- Wilson, A., et al. Jurkat T-cell lines exhibit marked genomic instability affecting karyotype, mutational profile, gene expression, immunophenotype and function. Sci Rep. 15 (1), 22426(2025).
- Dobersberger, M., et al. An engineering strategy to target activated EGFR with CAR T cells. Cell Rep Methods. 4 (4), 100728(2024).
- Van Bruggen, J. A. C., et al. Chronic lymphocytic leukemia cells impair mitochondrial fitness in CD8+ T cells and impede CAR T-cell efficacy. Blood. 134 (1), 44-58 (2019).
- Hoffmann, J. M., et al. Differences in expansion potential of naive chimeric antigen receptor T cells from healthy donors and untreated chronic lymphocytic leukemia patients. Front Immunol. 8 (1956), (2017).
- Zhang, D. K. Y., et al. Enhancing CAR-T cell functionality in a patient-specific manner. Nat Commun. 14 (1), 506(2023).
- Li, Y., Kurlander, R. J. Comparison of anti-CD3 and anti-CD28-coated beads with soluble anti-CD3 for expanding human T cells: differing impact on CD8 T cell phenotype and responsiveness to restimulation. J Transl Med. 8 (104), (2010).
- Xu, X. J., et al. Multiparameter comparative analysis reveals differential impacts of various cytokines on CART cell phenotype and function ex vivo and in vivo. Oncotarget. 7 (50), 82354-82368 (2016).
- Cornish, G. H., Sinclair, L. V., Cantrell, D. A. Differential regulation of T-cell growth by IL-2 and IL-15. Blood. 108 (2), 600-608 (2006).
- Zhou, J., et al. Chimeric antigen receptor T (CAR-T) cells expanded with IL-7/IL-15 mediate superior antitumor effects. Protein Cell. 10 (10), 764-769 (2019).
- Foster, J. B., Barrett, D. M., Kariko, K. The emerging role of in vitro-transcribed mRNA in adoptive T cell immunotherapy. Mol Ther. 27 (4), 747-756 (2019).
- Becker, S. A., et al. Enhancing the effectiveness of gammadelta T cells by mRNA transfection of chimeric antigen receptors or bispecific T cell engagers. Mol Ther Oncolytics. 29, 145-157 (2023).
- Wiesinger, M., et al. Clinical-scale production of CAR-T cells for the treatment of melanoma patients by mRNA transfection of a CSPG4-specific CAR under full GMP compliance. Cancers (Basel). 11 (8), 1198(2019).
- Wu, J., Wu, W., Zhou, B., Li, B. Chimeric antigen receptor therapy meets mRNA technology. Trends Biotechnol. 42 (2), 228-240 (2024).
- Sahin, U., Kariko, K., Tureci, O. mRNA-based therapeutics--developing a new class of drugs. Nat Rev Drug Discov. 13 (10), 759-780 (2014).
- Underwood, S., et al. T cell activators exhibit distinct downstream effects on chimeric antigen receptor T cell phenotype and function. Immunohorizons. 8 (6), 404-414 (2024).
- Zajc, C. U., Teufl, M., Traxlmayr, M. W. Affinity and stability analysis of yeast displayed proteins. Methods Mol Biol. 2491, 155-173 (2022).
- Seigner, J., et al. Solving the mystery of the FMC63-CD19 affinity. Sci Rep. 13 (1), 23024(2023).
- Jalkanen, A. L., Coleman, S. J., Wilusz, J. Determinants and implications of mRNA poly(A) tail size--does this protein make my tail look big. Semin Cell Dev Biol. 34, 24-32 (2014).
- Foster, J. B., et al. Purification of mRNA encoding a chimeric antigen receptor is critical for the generation of a robust T-Cell response. Hum Gene Ther. 30 (2), 168-178 (2019).
- Kitte, R., et al. Optimal chimeric antigen receptor (CAR)-mRNA for transient CAR T cell generation. Int J Mol Sci. 26 (3), 965(2025).
- Kiesgen, S., Messinger, J. C., Chintala, N. K., Tano, Z., Adusumilli, P. S. Comparative analysis of assays to measure CAR T-cell-mediated cytotoxicity. Nat Protoc. 16 (3), 1331-1342 (2021).
- Hu, L., et al. A nonviral approach to generate transient chimeric antigen receptor T cells using mRNA for cancer immunotherapy. J Vis Exp. (216), e67548(2025).
- Foster, J. B., et al. Transient mRNA CAR T cells targeting GD2 provide dose-adjusted efficacy against diffuse midline glioma and high grade glioma models. Neuro Oncol. 27 (10), 2684-2696 (2025).
- Usheva, Z. I., Petersen, D. L., Barington, T., Mouritzen, P., Barnkob, M. B. Droplet-based cytotoxicity assay to assess chimeric antigen receptor T cells at the single-cell level. J Vis Exp. (217), e67657(2025).
- Subham, S., et al. Rapid in vitro cytotoxicity evaluation of Jurkat expressing chimeric antigen receptor using fluorescent imaging. J Vis Exp. (200), e65560(2023).
- Zhao, Y., et al. High-efficiency transfection of primary human and mouse T lymphocytes using RNA electroporation. Mol Ther. 13 (1), 151-159 (2006).
- Xu, Y., et al. Closely related T-memory stem cells correlate with in vivo expansion of CAR.CD19-T cells and are preserved by IL-7 and IL-15. Blood. 123 (24), 3750-3759 (2014).
- Clausen, J., et al. Functional significance of the activation-associated receptors CD25 and CD69 on human NK-cells and NK-like T-cells. Immunobiology. 207 (2), 85-93 (2003).
- Poloni, C., et al. T-cell activation-induced marker assays in health and disease. Immunol Cell Biol. 101 (6), 491-503 (2023).
- Rotta, G., et al. Protocol for flow cytometry immunophenotyping of human antigen-specific T cells by activation-induced marker and Th1 cytokine detection. STAR Protoc. 6 (1), 103343(2025).
- Elsallab, M., et al. Second primary malignancies after commercial CAR T-cell therapy: analysis of the FDA adverse events reporting system. Blood. 143 (20), 2099-2105 (2024).
- Verdun, N., Marks, P. Secondary cancers after chimeric antigen receptor T-cell therapy. N Engl J Med. 390 (7), 584-586 (2024).
- Krug, C., et al. Stability and activity of MCSP-specific chimeric antigen receptors (CARs) depend on the scFv antigen-binding domain and the protein backbone. Cancer Immunol Immunother. 64 (12), 1623-1635 (2015).
- Kitte, R., et al. Lipid nanoparticles outperform electroporation in mRNA-based CAR T cell engineering. Mol Ther Methods Clin Dev. 31, 101139(2023).
- Sauerer, T., et al. Electroporation of mRNA as a universal technology platform to transfect a variety of primary cells with antigens and functional proteins. Methods Mol Biol. 2786, 219-235 (2024).
- Bimbo, J. F., et al. T cell-specific non-viral DNA delivery and in vivo CAR-T generation using targeted lipid nanoparticles. J Immunother Cancer. 13 (7), (2025).
- Hudecek, M., et al. Going non-viral: the Sleeping Beauty transposon system breaks on through to the clinical side. Crit Rev Biochem Mol Biol. 52 (4), 355-380 (2017).
- Prommersberger, S., et al. Minicircles for CAR T cell production by sleeping beauty transposition: a technological overview. Methods Mol Biol. 2521, 25-39 (2022).
- Aronovich, E. L., McIvor, R. S., Hackett, P. B. The Sleeping Beauty transposon system: a non-viral vector for gene therapy. Hum Mol Genet. 20 (R1), R14-R20 (2011).
- Soundara Rajan, T., Gugliandolo, A., Bramanti, P., Mazzon, E. In vitro-Transcribed mRNA chimeric antigen receptor T cell (IVT mRNA CAR T) therapy in hematologic and solid tumor management: A preclinical update. Int J Mol Sci. 21 (18), (2020).
- Granit, V., et al. Safety and clinical activity of autologous RNA chimeric antigen receptor T-cell therapy in myasthenia gravis (MG-001): a prospective, multicentre, open-label, non-randomised phase 1b/2a study. Lancet Neurol. 22 (7), 578-590 (2023).
- Dagher, O. K., et al. Preclinical efficacy of multi-targeting mRNA-based CAR T cell therapy in resection models of glioblastoma. Mol Ther Nucleic Acids. 36 (3), 102676(2025).
Yeniden basım ve izinler
