Mevcut çalışma, kromozom dizisi zaten biliniyor veya ilgi çekici olmayan plazmidlerin nanopore dizileme iş akışını açıklıyor. Başlangıçta bir plazmid DNA zenginleştirme adımı, optimal plazmid dizisi derinliğini sağlar ve akış hücresi başına dizilenebilen örnek sayısını maksimize eder.
Yöntem makalesi
Nanopore dizileme tabanlı iş akışları kullanarak uzun okuma plazmid dizileme ve montajı
* These authors contributed equally
Bu makalede
Özet
Özet
Mevcut çalışma, plazmid DNA verimini ve dizileme doğruluğunu maksimize etmek için nanopore dizileme iş akışını tanımlar. Araştırmacılar, plazmid DNA çıkarımı, hızlı barkodlama ve adaptör ligasyonu ile kütüphane hazırlama, kütüphanenin akış hücresine yükleme ve dizileme için yüklemesi, baz çağrısı (gerçek zamanlı veya sonra) ve Autocycler kullanılarak dizis montajını kapsar. Yazarlar ayrıca bilgisayar gereksinimlerini belirtir; bu gereksinimler büyük ölçüde taban çağrısının gerçek zamanlı yapıp yapılmadığına bağlıdır. Yazarlar, bu iş akışını kullanarak on klinik suştan saflaştırılmış plazmidleri dizilemiştir. Konak-hücre suş farklılıklarını değişken olarak ortadan kaldırmak için yazarlar bu klinik suşları ortak bir alıcı suşla birleştirmiş ve transkonjugantları dizilemiştir. Bu deneyler, jel hareketliliğinden çıkarılan plazmid boyutlarıyla eşleşen plazmid montajları üretmiştir ve bu yapımlar da kısa okuma parlatılmış montajlarla eşleşir veya %0,05 çift dizilik kimliği içinde bulunur. Plazmid DNA dizilerinin zenginlenmesi, plazmid dizileme verimliliğini de maksimize eder ve optimal kapsama ile 24 örnekle paralel dizileme yapılmasına olanak tanır. Bu protokol, 4 ila 174 kb arasındaki plazmidler için yeterlidir ve %72'ye kadar kromozom kontaminasyonuna dayanıklıdır ancak doğruluğu etkiler. Bu protokol, kromozom dizisinin zaten bilindiği veya ilgi çekici olmadığı durumlar için idealdir; örneğin plazmid dizisi doğrulaması, WGS ile elde edilen plazmid dizilerinin doğruluğunu artırmak veya konjugasyon ile yakalanan plazmidlerin dizilenmesi gibi. Bu çalışmayı göstermek için kullanılan organizma, rekombinant gen ekspresyonunda ve konjugasyon yoluyla plazmid yakalamada kullanılan konakçıları temsil eden Escherichia coli'dir.
Giriş
Plazmidler, bakterilerde yaygın olarak bulunan kendi kendini çoğalan DNA parçalarıdır. Boyutları oldukça değişkendir; <800 bp'den 2.5 Mbp'ye kadar değişir ve genellikle bimodal bir dağılım izler; daha küçük bir tepe çoklu kopyalı, konjugatif olmayan plazmidlere karşılık gelir ve daha büyük bir zirve düşük kopyalı, genellikle konjugatif plazmidler 1,2'ye karşılık gelir. Plazmidler, mikrobiyal ekolojide önemli bir rol oynar; konaklarının çevresel zorluklara uyum sağlamasına veya yeni ekolojik nişlere erişmesine yardımcı olan genleri taşır. Plazmidler ayrıca hızlandırılmış evrim için platformlar olarak hizmet eder; genetik plastisiteyi artırır ve suşlar, türler, cinsler ve hatta aileler arasında yatay gen transferini aracılıkeder 3,4. Ağ ve karşılaştırmalı genomik analizler, çevresel dirençin klinik olarak ilgili antibiyotik direnç genleri (ARG) için kalıcı bir rezervuar olarak rolünü doğrulamış ve böylece ekolojik ortamlarda korunmasını ve yayılmasınıkolaylaştırmıştır 5. Plazmidlerin ve onların antibiyotik direnci ile virülans genlerinin yükünü takip etmek, bulaşma yollarını belirlemeyeyardımcı olur 6. Bu nedenle, plazmidlerin tanımlanması ve karakterizasyonu, çeşitli halk sağlığı, klinik mikrobiyoloji ve biyoteknoloji uygulamaları için büyük ilgi görmektedir.
Bilinmeyen DNA şablonlarının yüksek verimli dizilemesini mümkün kılan yeni nesil dizileme (NGS) teknolojilerinin tanıtılması, mikrobiyal izolelerin genomik karakterizasyonuna kapı açmıştır. Tam genom dizileme (WGS), yeni patojenlerin, ilaç dirençli suşların ve aşıdan kaçan varyantların ortaya çıkışı, yayılımı ve iletimini takip etmeyi sağlar. Ayrıca, klinik salgınlar sırasında bulaşma yollarını belirlemeye yardımcı olmak için giderek daha fazla kullanılmakta ve gelecekteki salgın önleme için müdahalelerde bilgilendirmepotansiyeli yaratmaktadır 7. Son olarak, WGS ARG'lerin profillenmesine olanak tanır; bu da terapötik kararlarıyönlendirebilir 8, ancak ARG'leri niteliksel ve nicel antibiyotik direnç fenotipleriyle bağlamak hâlâ devam edenbir çalışma 9.
Ancak, WGS tarafından ölçekte üretilen kısa okuma (SR) dizileme verileri genellikle 400–500 bp aralığındadır. Bu boyut, çoğu Mobil Genetik Elementin (MGE) boyutundan daha kısadır ve bu nedenle onları çözemez. WGS verilerindeki plazmid dizilerinin in silico olarak tanımlanması, eksik kapsama ve plazmidler ile bakteriyel kromozomlar ile diğer plazmidler arasındaki ortak diziler nedeniyle daha dakarmaşıklaşır. Sonuç olarak, montajlar genellikle yoğun şekilde parçalanmış ve eksik olur, bu da subgenomik konumlarının (kromozomal veya plazmid)10'u atfedilmesini imkansız kılar.
Uzun okuma (LR) dizileme teknolojisi, daha fazla tekrarı kapsayan son derece bitişik montajlar üretir ve böylece tam plazmid montajlarının üretimini büyük ölçüde kolaylaştırır. Temelde iki tür uzun okumalı, tek moleküllü teknoloji vardır11,12. Bu yaklaşımlardan biri olan nanopore dizileme, düşük maliyeti, hızlı teslim süresi ve kaynak sınırlı ortamlara uygunluğu nedeniyle mikrobiyal genomikte popüler hale gelmektedir13,14.
Nanopore dizileme cihazları, binlerce nanoporlu diziler içeren akış hücreleri kullanır. DNA, akış hücresine yüklenir, helikaz aktivitesi olan bir motor protein tarafından açılır ve akım diferansiyel tarafından yönlendirilen nanopordan geçer. Belirli bir tek zincirdeki nukleotidler bireysel nanogözeneklerden geçerken, akım kesilerek her gözeneğe bağlı elektronik sensör tarafından ölçülen karakteristik bir sinyal üretilir. Bu sinyal, taban çağrısı algoritmaları kullanılarak çözülür ve ortaya çıkan veriler çeşitli biyoinformatik araçlarla daha sonra derlenir ve analiz edilir.
SR-dizileme yaklaşımlarına kıyasla, nanopore dizileme genellikle daha düşük okuma kalitesi (daha düşük Q-puanları) üretir ve elektrik sinyallerinin veri analizi sırasında homopolimer dizilerinde ekleme/silinme üretir (baz çağrısı)15. Ayrıca, yerel DNA'daki yakın metilasyonun sistematik baz çağrı hatalarına yol açabileceğide gözlemlenmiştir 16. Yaygın olarak benimsenen bir çözüm, montaj sonrası hata düzeltmesi için kısa okuma verilerinin dahil edilmesidir. Ancak, bu işlem ("cilalama" olarak bilinir) maliyeti ve karmaşıklığı artırır17. Dizileme kapsamasını artırmak da doğruluğu artırabilir, ancak teknik olarak her zaman mümkün değildir.
2024 yılında, Oxford Nanopore Dizileme (ONT) R10.4.1 akış hücreleri ve V14 kimyasının G-bakterileri için yüksek kaliteli ve bitişik montajlar sağladığı, tek nükleotid seviyelerindeki daha ince ölçekli analizlerin ise SR-dizileme verilerinden faydasağladığı gösterilmiştir 18. Ancak, LR- ve SR dizileme doğruluğu arasındaki boşluk yavaş yavaş kapanmaktadır. Son zamanlarda yapılan çeşitli gelişmeler arasında, daha hassas veri örnekleme süreci ve artırılmış dizileme hızı, doğal bakteriyel DNA ve metilasyon için özel olarak tasarlanmış yeni bir bazı çağıranın tanıtılması, böylece baz çağrıhassasiyeti 19 artırılmış ve faz alma, varyant çağrısı ve yıldız-allel çağrısı için yeni algoritmalar gibi güncellenmiş analiz araçları yer almaktadır. Ayrıca, en son Dorado algoritması V.0.9.0 ONT (2025) ham kıvrım verilerinin yeniden tabanlı çağrısı için kullanılabileceğini unutmayın. Gerçekten de, bazı WGS çalışmaları, kısa okuma parlatmanın konsensusdizisini önemli ölçüde iyileştirmesi beklenmeyen bir kalitede nanopor dizileme ile mikrobiyal genomların üretildiğini şimdiden rapor ediyor.
Plazmidler genellikle edinilmiş direnç genlerinin çoğunu içerir, özellikle Enterobacteriaceaeizolatlarında 22. Bu nedenle, plazmid dizilerini çözmek, AR genlerinin bağlamlandırılmasını sağlar ve bu AMRiletimini takip etmek için anahtardır 23,24. Nanopore dizileme, plazmidleri barındıran blaKPC'nin mikroevrimini incelemek içinzaten kullanılmıştır 25. MinION cihazları ayrıca plazmidlerin gerçek zamanlı tezgah dizilemesi ve klinik izolasyonlarda direnç genlerinin tespiti için hastane ortamlarındakullanılmıştır 26. Bununla birlikte, plazmid sorgulama henüz rutin enfeksiyon kontrol uygulamasının bir parçası değil.
LR-dizileme, genomikdizis 27'den plazmidleri kurtarma yeteneğinde SR-dizileme göre önemli bir gelişmeye sahip olsa da, bazı sorunlar hâlâ devam etmektedir. Flye28, Canu29 ve Raven30 gibi uzun okuma montajcılar yüksek kaliteli kromozomal montajlar üretir ancak plazmid dizilerini bir arada toplamakta zorlanır. Bunun bir nedeni, plazmid DNA'sının WGS dizilemeverilerinde yeterince temsil edilmemesi nedeniyle yeterli derinlik eksikliğidir. Modüler yapıları, ikincil yapılarının bolluğu ve sık tekrarların bulunması nedeniyle, plazmid DNA dizisi için yüksek kaliteli montaj kromozomal DNA'dan daha yüksek kapsama gerektirir (50x okumaderinliği 32).
DNA örneklerinin plazmid dizileriyle zenginleştirilmesi, kapsama derinliğini artırmak için etkili bir yaklaşımdır, ancak DNA dizilemesinden önce plazmid DNA'sının izolasyonu veya zenginleştirilmesi klinik tanı uygulamaları için çok pahalı veya zahmetlidir ve seçilmiş DNA dizilerinin zenginleştirilmesiyle önyargı yaratabilir. 2017 yılında, plazmid zenginleştirilmiş DNA,ARGs 24'ün tespiti için klinik örneklerde plazmid DNA'sının tam montajını denemek amacıyla kullanıldı. Altı farklı Enterobacteriaceae türünden sekiz izolat dizileyerek popülasyon ve plazmid yapısal çeşitliliği en üst düzeye çıkarıldı. Birkaç montaj makinesi denendikten sonra, Canu/Canu+Pilon'un diğerlerinden açıkça üstün olduğu gösterildi; Bu araştırma grubu ayrıca, ek plazmid yapılarının çözünürlüğünü sağlayan meta-montaj yaklaşımını denedi ve bu da dizilenmiş örneklerdeki bilinen plazmidlerin %78'inin tam bir şekilde birleştirilmesini sağladı. Ancak, büyük tekrarlı yapıların varlığı ve (daha az derecede) DNA çıkarımındaki sorunlar, tüm tek kontig plazmid yapılarının tespiti için önemlisorunlar yaratmaya devam etmektedir 24.
Daha yakın zamanda, düşük bolluklu plazmid dizilerinin zenginleştirilmesi için tamamlayıcı bir yaklaşım olarak uyarlanabilir örnekleme, bakteriyel izole örneklerindeki kromozomal dizileri reddederek incelenmiştir; ancak bu yöntem bilinen referansdizilerini gerektirir 33.
Burada, yazarlar, plazmid DNA'sı ile zenginleştirilmiş örnekler için özelleştirilmiş ONT dizileme protokollerini tanımlar. Plazmid DNA'sının artan temsili, güncel kütüphane hazırlama protokolleri, akış hücresi teknolojisi ve dizi montaj araçlarıyla birleştirerek, iş akışı jel hareketliliğinden çıkarılan boyutlara uygun montajlar üretti ve vakaların üçte ikisinde ya SR-dizileme parlatma ile eşleşen ya da %0,05 çift dizisi kimliği içinde bulundu. Plazmid DNA dizilerinin zenginlenmesi, plazmid dizileme verimliliğini de maksimize eder ve optimal kapsama ile 24 örnekle paralel dizileme yapılmasına olanak tanır. Protokoller, standart nanopore WGS yaklaşımlarının yerini almak için değil, kromozom dizisinin zaten bilindiği veya ilgi çekici olmadığı durumlarda plazmid dizilemesinin doğruluğunu ve verimliliğini maksimize etmek için tasarlanmıştır.
İş akışı, plazmid DNA çıkarımı, barkodlama ile kütüphane hazırlığı, motor proteine adaptör ligasyonu, akış hücresinin kontrolü, kütüphanenin akış hücresine dizileme için yüklenmesi, elektrik sinyallerinin veri analizi (gerçek zamanlı veya sonradan sonra), Autocycler34 ile dizis montajı ve çeşitli sonraki analizleri içerir (Şekil 1).
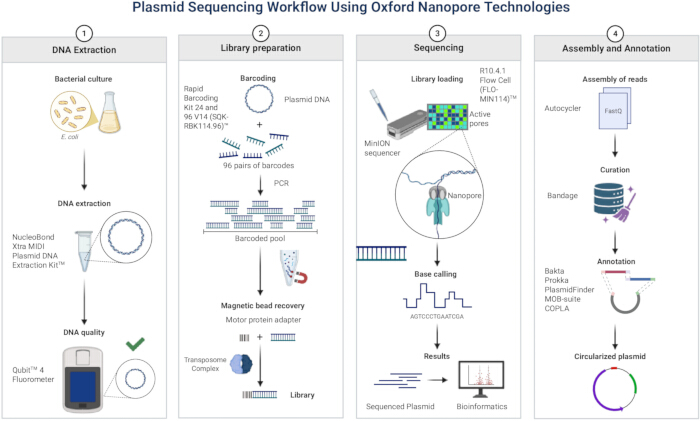
Şekil 1: Oxford Nanopore Teknolojileri kullanılarak plazmid dizileme iş akışı. Adım 1: DNA çıkarımı; Adım 2: Kütüphane hazırlığı; Adım 3: Dizileme; Adım 4: Montaj ve açıklama. BioRender'da oluşturuldu. Cortés, G. (2026) https://BioRender.com/u3b15st. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Protokol
1. Plazmid DNA Çıkarımı
NOT: Bu protokol, klinik bir Escherichia coli suşundan plazmid DNA'sı ve ona karşılık gelen transkonjugantlardan ticari bir plazmid DNA ÇıkarmaKiti 35 kullanılarak çıkarılmak için kullanılmıştır. Çekim için ayrıntılı protokoller36'da bulunabilir. Protokol, hem yüksek hem de düşük kopyalı plazmidler için uygundur; ~3 kb'den ~200 kb'ye kadar değişir. Büyük plazmidler genellikle düşük kopya sayısına sahip olmaları (hücre başına 1–2 kopya kadar) nedeniyle özel dikkat gerektirir ve bu da DNA verimini sınırlar. Bunu telafi etmek için, protokol hücre kütlesinin ve liz ile nötralizasyon tamponları hacimlerinin artırılmasını önerir; böylece kolon bağlanması için yeterli plazmid DNA'sı sağlanır. Bu protokolle 200 kb'ye kadar plazmidler hâlâ geri alınabilir; Ancak, mega plazmidlere (>200 KB) uygulanabilirliği sınırlıdır.
- Plazmid çıkarımı
- 1. Gün: Luria–Bertani (LB) agar plakalarına çizgi örnekleri uygulanır, ilgili plazmid taşınan direnç belirteci seçilir ve 37 °C'de 24 saat kuluçka yapılır.
NOT: LB'ye karbenisilin (veya uygun antibiyotik) ekleyin; son konsantrasyon 100 μg/mL olan, mL ortam başına 100 mg/mL stok çözeltisi ekleyerek. - 2. Gün: 1. günden itibaren tek bir izole koloni ile uygun antibiyotik ortamla 3–5 mL LB aşılan. 37 °C'de sallanarak ~8 saat veya kültür 1–2 oranına ulaşana kadar inkubasyon yapın.
NOT: OD600 ölçümü: Uygun antibiyotik içeren taze LB ortamıyla spektrofotometreyi boşaltın, ardından 1 mL kültürü temiz bir küvete aktarın ve OD 600 nm'de ölçün. Eğer okuma doğrusal aralığı aşarsa, örneği seyreldin ve yeniden ölçün. - 400 mL LB'yi uygun antibiyotik ortamla takviye edilmiş, 400 μL 2. gün başlangıç kültürü ile aşılayın. 37 °C'de sallanma ile 8–12 saat veya OD600 1–2'ye ulaşana kadar (daha önce tarif edildiği gibi) kuluçka yapın.
NOT: OD600 12 saat içinde 1–2'ye ulaşmazsa kültür hacmi 400 mL'nin üzerine çıkarılmalıdır. Plazmid kaybı veya yeniden düzenlenme riskini azaltmak için, kültürde geçişi mümkün olduğunca sınırlayın ve tüm büyüme aşamalarında antibiyotik seçimini sürdürün. Kültür hacmini yalnızca daha yüksek DNA verimi istendiğinde artırın. - 3. Gün: Kültürü kültür hacmine uygun santrifüj şişelerine aktarın. 4200 x g ile 10 dakika boyunca santrifüj yapın, ardından üreticinin önerdiği reaktif hacimleriyle peleti aşağıdaki formüle göre yeniden askıya alın:
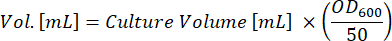
NOT: Örnek: 400 mL düşük kopya bakteriyel kültürün (OD600 = 2) lizlenmesi için, uygun liz tamponları RES, LYS ve NEU her biri 16 mL'dir.
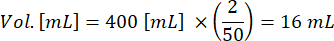
NOT: Resüspansiyon, lize veya nötralizasyon için reaktif hacimleri toplam kültür biyokütlesine (OD600 × Hacim veya ODV) doğru ölçeklendirilmezse, lizin eksik, nötralleştirme verimsiz ve çökeltme oluşumu aşırı olabilir. Bu durum, daha düşük plazmid verimine, azalan saflığa ve arıtma kolonlarının tıkanmasına yol açabilir. Üreticinin formülü kullanılarak (adım 1.1.4) tampon hacimlerinin orantılı olarak ölçeklendirilmesi, verimli bir lizi, tam nötralleşme ve yüksek kaliteli plazmid DNA'nın tutarlı geri kazanımı sağlar. - Hücre lizisi, uygun tampon kullanarak filtre ıslatma ve kit tarafından verilen talimatlara göre nötralleştirme yapılsın.
NOT: Çökeltme hacmi büyükse iki filtre üst üste yığın, tamponu orantılı olarak ayarlayın. Üst gövde opak kalıyorsa ek santrifüj adımları yapın. Nötralizasyondan sonra, yüksek hacimli çökeltme için ek santrifüj adımları gerekebilir. Bu, çoğu E. coli klinik örneği için geçerlidir; muhtemelen kültür37'de biyofilm oluşturma eğilimindedirler; bu kültür kalınbir matriks 38'in salgılanmasını içerir. Lizattaki aşırı çökelti kolonu tıkatır, boşalma süresini uzatabilir ve örnek proteinlerle kontamine olabilir. Eğer üst yüzey temizse, bu ek adımlar gerekli olmayabilir. - Lizatı 4200 x g ile 30 dakika boyunca santrifüj yapın. Süpernatantı yeni bir tüpe aktarın ve tekrar 30 dakika boyunca santrifüj yapın. Eğer bu spinlerden sonra üst fırlatıcı opak kalıyorsa (Şekil 2), 4200 x g hassasiyetinde ekstra bir santrifüj gerçekleştirin.
NOT: Santrifüjasyon sırasında lizatın 50 mL'lik kültür tüpüne aktarılması, çökeltinin bazen düzgün pellet oluşmaması ve tüpün üst kısmında hapsolmasının sağlanmasını kolaylaştırabilir. İşlenen büyük hacimler nedeniyle, tek bir sütun doygunlaşabilir ve ek örnekleri kabul edemeyebilir. Filtrasyon hızını artırmak veya DNA verimini maksimize etmek için lizat, iki sütun arasında bölünebilir. - EQU, WASH ve ELU adımlarını kit talimatlarına göre yapın.
- İzopropanol kullanarak DNA çökeltti.
NOT: Pellet görünmüyorsa ~10 dakika -20 °C'de kuluçka yapın. Ancak, genellikle süpernatantı dikkatlice çıkarmak en iyisidir; çünkü pelletin tüp duvarlarına yapışmış kalacağına güvenerek, görünür olmasa bile. - DNA'yı talimatlara göre etanol ile yıkayın. Protein çökeltmesi devam ediyorsa ek yıkama yapın.
- Oda sıcaklığında (~20 °C) 15–30 dakika boyunca kuru DNA.
- DNA'yı 100 μL nukleazsız suda yeniden süspansiyon; bu küçük hacim, Nanopore kütüphanesi hazırlığı için konsantrasyonun maksimizasyonuna yardımcı olur.
NOT: Burası uygun bir durak noktasıdır. Plazmid DNA'sı birkaç ay boyunca –20 °C sıcaklıkta depolanabilir. Bu protokolde kullanılan ekstraksiyon kiti, kromozomal (genomik) DNA'dan kontaminasyonu optimize edilmiş tampon kimyası, hafif liz ve lizat açıklaştırma adımları ile en aza indirmek için tasarlanmıştır; ancak önemli kromozomal DNA kirlenmeleri dışlanamaz ve yazarlar bunu hazırlıklarda bulmuşlardır (sonuçlara bakınız).
- 1. Gün: Luria–Bertani (LB) agar plakalarına çizgi örnekleri uygulanır, ilgili plazmid taşınan direnç belirteci seçilir ve 37 °C'de 24 saat kuluçka yapılır.
- DNA verimi ve kalite kontrolü
DNA'yı nicelikle ölçüp kalitesini UV emici yöntemlerine kıyasla düşük DNA konsantrasyonları için daha fazla özgüllük ve hassasiyet sunan floresan boyalar kullanarak değerlendirin. Bu protokolde, DNA, RNA veya protein örneklerini doğru ve kolay şekilde niceliklendirmek için bir Fluorometre cihazıkullanılır 39.- Fluorometre iş akışı
- DNA örneklerini oda sıcaklığına getirin. Tüpleri standartlar ve örnekler için hazırlayın.
NOT: Çalışma çözüme dahil edilecek uygun boya ve tampon hacimlerini örnek sayısına göre hesaplayın. Her standart ve örnek için, tampon içindeki boya 1:200 oranında seyreltilerek 200 μL çalışma çözeltisi hazırlanmalıdır. Cihazda, bu hesaplamalar için de kullanılabilen yerleşik bir Reaktif Hesap Makinesi bulunur. - Analiz tüplerini Tablo 1'e göre hazırlayın.
- Her tüpü birkaç saniye girdabla geçirin, ardından oda sıcaklığında 2 dakika kuluçka yapın.
- Florometreyi standartlara göre kalibre edin. Numune tüplerini yerleştirin ve okumaları kaydedin. Detaylı talimatlar için Fluorometrekılavuzu 39'a bakınız.
NOT: Tipik plazmid Midi preparatları için, plazmid boyutu, kopya sayısı ve büyüme koşullarına bağlı olarak DNA verimlerinin 100–400 mL kültür başına ~50 ila 150 μg arasında değişmesi beklenmektedir. Tipik nanopore okuma uzunlukları ~2 kb ile 20 kb arasında değişir; standart plazmidler için medyan okumalar genellikle 5–10 kb civarındadır. Ligasyon tabanlı kitler, daha büyük plazmidler için daha uzun okumalar (>20 kb median) üretebilir, ancak hızlı kit biraz daha kısa okuma pahasına daha hızlı hazırlık sağlar.
- DNA örneklerini oda sıcaklığına getirin. Tüpleri standartlar ve örnekler için hazırlayın.
- Fluorometre iş akışı
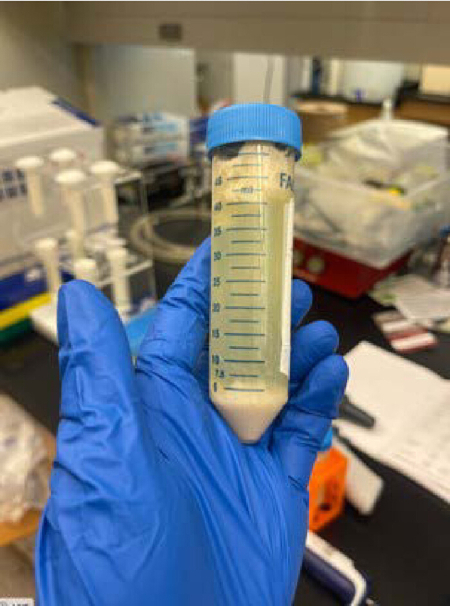
Şekil 2: Bir santrifüj adımını takip eden bulutlu lizat üst. Süpernatant şeffaf olana kadar filtreleme kolonunun tıkanmasını önlemek için seri santrifüjleme gereklidir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
| Standart test tüpleri | Kullanıcı örnek testi tüpleri | |
| Çalışan çözüm (boya ve tampon, 1:200) | 190 μL | 180–199 μL |
| Standard (kitten) | 10 μL | – |
| Kullanıcı örneği | – | 1–20 μL |
| Her test tüpündeki toplam hacim | 200 μL | 200 μL |
Tablo 1: Florometre için reaktif hacimleri ve miktarları. Miktarlar tek bir örnek için gösterilmiştir; Analiz edilecek örnek sayısına göre bir havuz hazırlanabilir.
2. Yöntem 2: Kütüphane Hazırlığı
NOT: Dikkate alınan bir nokta. Çıkarılmış plazmidlerin dizilenmesi için kütüphane hazırlığı, BarkodKiti 40 ile verilen talimatlara göre gerçekleştirildi. Bu protokol, DNA'yı aynı anda parçalamak ve barkodlamak için transpozaz tabanlı bir yaklaşım kullanan bir kit kullanır; hızlı ve akıcı bir iş akışı sunar, uygulamalı zamanı azaltır ve kütüphane hazırlığını kolaylaştırır.
- DNA hazırlama
- 1. Gün: Termal döngücü programlayın: 2 dakika 30 °C, ardından 2 dakika 80 °C.
- Bileşenleri oda sıcaklığında erit, spin down ve Tablo 2 uyarınca karıştır.
NOT: Santrifüj kullanıyorsanız, 330 x g'yi aşmayan yavaş bir hızda aşağı döndürün. - DNA'nın nükleazsız suda hazırlanması: 200 ng DNA 0.2 mL PCR tüplerine aktarın ve her numuneye uygun miktarda nukleazsız su ekleyerek nihai hacmi 10 μL'ye ulaştırın. Nazikçe pipetle 10–15 kez karıştırın. Aşağıdaki adımlarda daha kolay pipetleme sağlamak için mikrofüge veya santrifüjde 330 x g hızında kısa bir süreliğine aşağı spin yapın.
- Karışımları Tablo 3'te belirtildiği gibi PCR tüplerinde hazırlayın.
- Pipetle karıştırın, sonra kısa bir süreliğine çevirin.
- PCR tüplerini Adım 1'den itibaren termal döngü programıyla kuluçka edin. Tüpleri soğuması için buzun üzerine koyun.
- Kısa bir süre dön.
- Yerel barkod ligasyonu
- Temiz 1.5 mL Eppendorf tüpünde barkodlu örnekleri havuzlayın. Toplam hacmin 1000 μL'yi geçmediğinden emin olun.
- Boncukları vorteksle yeniden askıya alın. Havuzlanmış barkodlu örneklere eşit miktarda boncuk ekleyin ve flaş ederek karıştırın.
- Tüpleri oda sıcaklığında Hula mikserinde 10 dakika kuluçka yapın.
- Nükleaz içermeyen suda %80 etanol içeren 2 mL hazırlayın.
- Tüpü bir mıknatısa tutarak numuneyi ve pelleti aşağı döndürün. Tüpü mıknatısın üzerinde tutarak, pipetle üst malzemeyi atık olarak çıkarın.
NOT: Neodim mıknatıslar dahil uygun güç ve boyutta herhangi bir mıknatıs, pahalı bir mıknatıs rafına etkili bir alternatif olarak hizmet edebilir. Yaklaşık 5–12 lb tutma gücüne ve 0,3–1 inç çapına sahip mıknatıslar genellikle standart 0,2–1,5 mL tüpler için uygundur; böylece boncuk tabanlı temizlik aşamalarında süpernatantın temiz şekilde temizlenmesini sağlar. - Mıknatıs üzerinde 1 mL %80 etanol ile boncukları yıka. Etanolü çıkarın. Yıkamayı tekrarlayın.
NOT: Tüpün mıknatısa göre konumunun değiştirilmesi, etanolün çıkarılmasını kolaylaştırabilir. Pelet yanlışlıkla bozulmazsa tam boncuk peletini sağlamak için ek bir düşük hızlı dönüş kullanın. - Kısa bir süreliğine aşağı döndürün ve tüpü tekrar mıknatısın üzerine yerleştirin. Kalan etanol pipetleyin. 30 saniye kurut, ama peleti çatlamayacak kadar kurutmayın.
- Mıknatıst çıkarılır ve boncukları elusiyon tamponunda yeniden askıya alın. Kullanılan barkod sayısına bağlı olarak kullanılacak uygun EB hacimleri için Tablo 4'e bakınız.
- Tüpü oda sıcaklığında 10 dakika kuluçka edin.
- Tüpü mıknatısa geri getirin, eluat temizlenene kadar.
- Kütüphane hazırlığının başarıyla yapıldığından emin olmak ve arızalı bir kütüphanede bir Akış Hücresi israf edilmesini önlemek için florometrede elütasyon edilen örnekten 1 μL kullanarak DNA konsantrasyonunu nicelikle ölçün.
- Adaptör ligasyonu
- DNA kütüphanesinden 11 μL yeni bir tüp ve etikete aktarın.
NOT: Gerekirse gelecekteki dizileme işlemleri için ekstra DNA -20 °C'de sakla. - Çözülmüş Rapid Adapter'i Tablo 5'e göre yeni bir tüpte seyreldin ve pipeti yukarı aşağı karıştırın.
- 11 μL DNA kütüphanesine 1 μL seyreltilmiş RA ekleyin.
- Tüpü karıştırmak için fırlatın, kısa bir süre aşağı döndürerek tam hacmin tüpün dibinde birikmesini sağlayın.
- Tezgahta 5 dakika kuluçka yapın.
- DNA kütüphanesinden 11 μL yeni bir tüp ve etikete aktarın.
| Reaktif | Oda sıcaklığında erime | Aşağı dön | Pipetle karıştırma |
| Hızlı Barkodlar | Donmuş Değil | ✓ | ✓ |
| Hızlı Adaptör | Donmuş Değil | ✓ | ✓ |
| AMPure XP boncukları | ✓ | ✓ | Hemen kullanmadan önce pipetleme veya vorteksle karıştırın |
| Elution Buffer | ✓ | ✓ | ✓ |
| Adaptör Tamponu | ✓ | ✓ | Vortexing ile karıştırma |
Tablo 2: Nanopore kütüphanesi hazırlığı için reaktifan hacimleri ve miktarları. Her reaktifle yapılacak eylemler (✓) olarak işaretlenmiştir.
| Reaktif | Hacim/örnek |
| 10 μL Şablon DNA (önceki adımdan 200 ng) | 10 μL |
| 1.5 μL Hızlı Barkodlar, her örnek için bir tane | 1.5 μL |
| Toplam hacim | 11.5 μL |
Tablo 3: Hızlı barkodlama için reaktifler ve hacimler. Her DNA örneği için hacimler gösterilir; bir havuzlanmış karışım hazırlanabilir ve DNA ayrı ayrı eklenebilir.
| 1-24 barkodlar | 48 barkod | 72 barkod | 96 barkod | |
| Elution Buffer Hacmi | 15 μL | 30 μL | 45 μL | 60 μL |
Tablo 4: Her 24 barkod için kullanılan elution tampon hacimleri. Hacimler barkod sayısına göre gösterilir.
| Reaktif | Hacim |
| Hızlı Adaptör (RA) | 1.5 μL |
| Adaptör Tamponu (ADB) | 3.5 μL |
| Toplam Hacim | 5μL |
Tablo 5: Reaktifler ve adaptör miktarları. Hacimler, örnek sayısına bağlı olarak ayarlanabilir.
3. Akış hücresi çalışması
NOT: Orta kapsama gereksinimi olan az sayıda plazmid dizilerken, standart çıkış akış hücresi seçin. Nanopore, aktif gözenek sayısını belirlemek için akış hücresi kontrolü yapılmasını önerir; Nanopore cihazlarının akış hücreleri, garanti kriterlerinde tanımlanan en az 800 aktif gözene sahip olmalıdır. Tek bir MinION akış hücresi, plazmid DNA'sı ile zenginleştirilmiş birden fazla DNA örneğinin dizilenmesi için yeterli çıktı sağlar (çoklu yayım hakkında daha fazla detaya tartışma bölümünde bakınız) ve GRIDion veya Promethean akış hücresine göre daha düşük maliyet ve daha fazla esneklik sunar.
- Akış hücresinin astarlanması ve yüklenmesi
NOT: Bu protokolü geliştirmek için 2022'de yayımlanan R10.4.1 akış hücreleri kullanılmıştır. Bu akış hücrelerinin gözenekleri daha uzun ve çift okuyucu başlığına sahiptir, bu da homopolimer dizilemesinin iyileştirilmesine yol açmaktadır20,21. Bu dizileme protokolü ve Barkod Kiti diğer akış hücreleriyle uyumlu değildir. Büyük ölçekli çoklu yayın yaparken, yüksek kapsama hedeflerken veya daha büyük plazmidler veya genomlarla çalışırken yüksek çıkışlı akış hücresini tercih edin. Maliyet, veri verimliliği ve dizileme kalitesini dengelemek için örnek sayısını ve hedef derinliğini göz önünde bulundurun.- Reaktifleri soğuk depolamadan çıkarın; bunlar arasında dizileme tamponu (SB), kütüphane boncukları (LIB) veya kütüphane çözeltisi (LIS), sığır serum albümini (BSA), akış hücresi tonu (FCT) ve akış hücresi yuyulması (FCF) dahil. Oda sıcaklığında buzda eriyin. Reaktifler çözüldükten sonra, vortex karıştırır, hızlı döndürür ve buzda saklanır.
- Akış hücresi primingini, tablo 6'da listelenen reaktiflerle taze bir DNA tüpü karıştırarak hazırlayın. Ters çevirme ve pipetleme ile karıştırın.
- Cihazın kapağını kaldırın ve akış hücresini yerleştirin. Doğru yerleştirmeyi sağlamak için nazik baskı uygulayın.
- Astarlama portunu kapağı kenara iterek açığa çıkarın.
- Astarlama portunun içinde veya yanında hava kabarcıkları olup olmadığını kontrol edin. Kabarcıkları çıkarmak için 20–30 μL sıvıyı geri çekin.
NOT: 20–30 μL'den fazla tampon çıkarmayın. Gözenekler her zaman tampon içinde su altında kalmalıdır. Havaya maruz kalan gözenekler kullanılamaz hale gelebilir. Tamponun görünür kanal boyunca sürekli olduğundan emin olun. - 800 μL astar karışımı çekin ve astarlama portuna dağıtın. Hava kabarcıklarını sokmaktan kaçının. Cihazı 5 dakika bekletin.
- Lib'i yukarı aşağı pipetle yeniden askıya alın.
NOT: Kullanımdan hemen önce tekrar askıya alın, çünkü özgürlük hızla yerleşir. - DNA kütüphanesini, Tablo 7'de belirtildiği gibi uygun miktarda kütüphane boncuklarıyla yeni bir tüpte karıştırın.
NOT: Yazarların kullandığı Rapid Barcoding kiti, transpozaza tabanlı bir yaklaşım kullanarak DNA'yı parçalayıp barkodları kasıtlı boyut seçimi olmadan ekliyor, bu nedenle okuma uzunlukları esas olarak orijinal giriş DNA'sını yansıtır. Native Barcoding Kits gibi ligasyon tabanlı kitlerin aksine, Rapid Barcoding kiti ayrı kısa veya uzun parça tamponları içermez. Daha uzun DNA uzun okumalar üretebilse de, dağılım daha değişken ve genellikle uzun parçaları zenginleştirmek için Long Fragment Buffer kullanan ligasyon tabanlı kütüphanelere göre daha kısadır. Tamponların olmaması iş akışını basitleştirir ve uygulamalı zamanı azaltır, ancak kütüphane boyutu dağıtımı üzerinde daha az kontrol sağlar ve bu da montaj kalitesini etkileyebilir. Ligasyon tabanlı kitler, büyük parçaları seçici olarak zenginleştirip kısa olanları çıkararak, genellikle daha yüksek medyan okuma uzunlukları ve özellikle de novo montajlar ve karmaşık genomlar için daha iyi montaj sürekliliği sağlar. - Numune portu kapağını portu gösterecek şekilde ayarlayın. Akış hücresi priming portuna 200 μL priming karışımı yükleyin.
- Hazırlanan DNA kütüphanesini yüklemeden önce nazikçe karıştırın.
- DNA kütüphanesinden boncuklarla birlikte 75 μL parçasını örnek portuna birer damla dağıtın, her damla bir damlayı emmeye izin verin ve sonra bir diğerini ekleyin.
- Numune portu kapağını tekrar uygulayın ve astarlama portunu kapatın.
- Işık kalkanını akış hücresine ekleyin; ışık kalkanının ön kenarını klipsle hizalayıp sonra kalanını aşağı indirerek akış hücresini kaptırın. Işık kalkanını klipserin altına yerleştirmeye çalışma. Işık kalkanı kapağın etrafında durmalı ve akış hücresinin üst kısmının tamamını ışığa maruz bırakmadan korumalı.
NOT: En iyi dizileme çıktısı için kütüphane yüklenir yüklenmez ışık kalkanını akış hücresine takın. Kütüphane akış hücresinden çıkarılana kadar sonraki adımlarda açık bırakın. Işık kalkanı cihaza güvenli şekilde sabitlenmemiştir; Yerini değiştirmemek için dikkatli davranın. - Cihaz kapağını sıkıca kapatın ve sıralama çalışmasına başlayın.
- Dizileme koşu-hesaplama gereksinimlerinin başlangıcı:
Minimum: 8 iş parçacıklı CPU, 16 GB RAM, 1070 NVIDIA GPU, 500 GB SSD
Önerilen Seçenekler: 16 iş parçacıklı CPU, 32 GB RAM, 2070 NVIDIA GPU, 1 TB SSD
NOT: Hem yazılımın hem de bilgisayarın güncel olduğundan ve yeni dosyaları barındırmak için en az 500 GB boş depolama alanına sahip olduğundan emin olun. Yazılım güncellemeleri ve diğer programlar sıralama çalışmasına engel olabilir. Yazılımı Windows veya Ubuntu işletim sisteminde çalıştırdığınızdan emin olun.- Çalışma zaman sınırını ayarlayın: Çoklanan plazmidlere bağlı olarak, çalışma sınırını belirleyin. Varsayılan süre 48 saat, maksimum 72 saat çalıştırılabilir. Detaylı talimatlar için kılavuza bakınız.
NOT: çalışma süresi, plazmid sayısından ziyade çoklu plazmid ve plazmid boyutuna bağlıdır. Çoklayabileceği örnek veya plazmid sayısı, istenen dizileme derinliğine ve akış hücresinin çıktısına bağlıdır. Tipik plazmid dizileme için, standart nanopore akış hücresi başına 20–24 örnek çoklamak, genellikle doğru montaj ve varyant tespiti için yeterli kapsama sağlar; plazmid boyutları ~200 kb'nin altında varsayılırdı. Daha büyük plazmidler veya daha yüksek kapsama gereksinimleri, akış hücresi başına daha az örnek gerektirebilir. Daha yüksek çıkışlı akış hücreleri, her çalışma başına çok daha fazla örnek (96 veya daha fazla) destekleyebilerek, yüksek verimli plazmid dizileme veya çok derin kapsama gerektiren projeler için uygun hale gelir. Kullanıcılar, her plazmid için yeterli okuma almasını sağlamak için barkod sayısını, plazmid boyutunu ve hedef derinliğini dengelemelidir. - Dizileme sırasında demultiplexing yapılırsa barkod kesme etkinleştirin.
NOT: Barkod başına okumaları izleyin ve akış hücresinin ömrünü korumak için yeterli kapsama sağlandığında çalışmayı durdurun. - Süper hassas baz çağrısı modunu seçin.
NOT: Uyarlanabilir örnekleme/barkod dengeleme seçeneğini seçmeyin. Bu seçenek, okuma çıkışını büyük ölçüde azaltır ve gözenekleri daha hızlı bir şekilde bozar. GPU'n yoksa, koşu bittikten sonra basecall'i ertelemek daha iyidir. - Uygun hızlı barkod kitini (24 veya 96) seçin.
- Cihazın düz olduğundan emin olun ve sıralandırma çalışmasını varsayılan ayarlarda başlatın (minimum Q puanı 10).
NOT: Burası uygun bir durak noktasıdır. Cihaz gece boyunca çalıştırılabilir. - Post-hoc basecalling (bilgisayarın canlı basecall için yeterli kapasitesi yoksa veya taban çağrısının doğruluğunu artırmak için ham veriyi geliştirilmiş analitik araçlarla yeniden analiz ederse): yazılımda tamamlanmış dizileme çalışmasını açın
NOT: Sonraki adımlar sadece canlı basecalling'i seçmediyseniz geçerlidir. - Basecalling'i seçin ve süper doğruluk (SUP) modelini seçin.
- Ham FAST5/POD5 verilerini seçin ve bir çıktı dizini ayarlayın.
- Basecall yapmaya başla.
- Çalışma zaman sınırını ayarlayın: Çoklanan plazmidlere bağlı olarak, çalışma sınırını belirleyin. Varsayılan süre 48 saat, maksimum 72 saat çalıştırılabilir. Detaylı talimatlar için kılavuza bakınız.
| Reaktifler | Akış hücresi başına hacm |
| Akış Hücresi Yıkama (FCF) | 1.170 μL |
| 50 mg/mL sığır serum albümini (BSA) | 5 μL |
| Akış Hücresi Tether (FCT) | 30 μL |
| Tüp içindeki nihai toplam hacim | 1.205 μL |
Tablo 6: Akış hücresinin astarlanması ve yüklenmesi için reaktifler ve hacimler. Akış hücresi başına reaktif hacmi belirtilir.
| Reaktifler | Akış hücresi başına hacm |
| Dizileme tamponu (SB) | 37.5 μL |
| Kütüphane boncukları (LIB) veya kütüphane çözümü (LIS), eğer kullanılıyorsa | 25.5 μL |
| DNA kütüphanesi | 12 μL |
| Toplam | 75 μL |
Tablo 7: Kütüphaneyi yüklemek için reaktifler ve ciltler. DNA kütüphanesi için ciltler gösterilmiştir; Kütüphane boncukları (bid) kullanımdan hemen önce karıştırılmalıdır.
4. Yöntem 4: otomatik döngücü kullanarak montaj
NOT: Okumaların contiglere birleştirilmesi için birçok seçenek vardır. Her assembler'ın olumlu yönleri ve önyargıları vardır. Bu protokol, birçok farklı montajı kullanan ve bunları tek bir montajda birleştiren Autocycler kullanılmasını önerir. Bu daha fazla emek gerektiriyor ve zaman kazanmak için tek bir montaj cihazı kullanabilirsiniz. Uygun yazılımı indirmek için lütfen terminale Conda yükleyin. Ek komutlar belgesi, sistemi kurmak için çevresel dosyaya bağlantı içerir.
- Koşu kalitesini değerlendirin: Minknow yazılımından veya çalışma raporundan .html dosyasından koşu kalitesini kontrol ederek kalite metriklerini (verim, Q-puanları, uzunluk, dağılım) not edin. Isteğe bağlı olarak, FASTQ dosyalarını NanoPlot kullanarak okuma uzunluğu dağılımı, N50 ve her barkod için kalite puan profillerini doğrulamak için değerlendirebilirsiniz. Yalnızca dizileme verimi ve okuma uzunluğu dağılımları beklenen plazmid boyutlarıyla tutarlıysa devam edin.
- Barkodları kaldırın: Dizileme sırasında barkod kesme etkinleştirilip etkinleştirilmediğini belirleyin. Barkodlar kaldırılmadıysa, FASTQ dosyalarını Porechop (v0.2.4) ile kesin ve barkod adaptör dizilerinin başarılı şekilde kaldırılmasını doğrulayın, sonraki analizden önce.
- Trim okumalar: Uzun okumaları Filtlong (v0.3.1) ile kırpın, en düşük kaliteli okumaların yaklaşık %5–10'unu kaldırır ve toplam verimin ~%90'ını korur. Montaj için filtrelenmiş bir FASTQ dosyası oluşturun. Sonraki montajlar kimerik contig üretirse, minimum okuma uzunluğu eşiğini ≥3.000 bp olarak uygulayarak filtreleme katığını artırın ve filtrelenmiş okumaları yeniden üretin.
- Alt örnekleme ve okuma alt kümelerini birleştirin: Önerilen ayarlara göre Autocycler kullanarak alt numune okuyor ve her okuma alt kümesini Raven (v1.8.3), Flye (v2.9.6), Canu (v2.3.0), miniasm (v0.3.0), Myloasm (v0.2.0), NECAT (v0.0.1), Plassembler (v1.8.1) ve diğer tercih edilen montajlar kullanarak birleştirin. Her montaj için contig uzunluklarını ve daireselleştirme durumunu not edin. Daireselleştirme raporu veren montajcılar (Raven, Flye, miniasm, Myloasm ve Plassembler) plazmid rekonstrüksiyonu için önceliklendirilmelidir. Canu ve NECAT montajları için, önceki montajlarda dairesel contiglerden beklenen plazmid boyutuna göre aday plazmid contigleri belirlenir.
- Montajları inceleyin ve kürleyin: Her montaj grafik dosyasını (.gfa) Bandage (v0.9.0) ile görselleştirin ve contigleri dairesellik, montaj cihazları arasında boyut tutarlılığı ve kimerik birleşmelerin kanıtı açısından değerlendirin. Birden fazla montajcı arasında destek eksikliği olan doğrusal contigleri kaldırın ve tutarlı boyut tahminleriyle dairesel bağlantıları koruyun. Birçok montajda kimerik birleşimler varsa, 4.3. adıma geri dönün ve minimum okuma uzunluğu eşiğini artırın (önerilen ≥3.000 bp). Ana plazmidler dairesel halde daha küçük, desteklenmeyen contigler kaldığı durumlarda, konsensus oluşturulmadan önce küçük contigler çıkarılır. Konsensus oluşturma ve parlatma adımları manuel küratlamadan sonra toplu olarak gerçekleştirilebilir.
- Uzlaşma ve nihai montaj oluşturun: Manuel küralamadan sonra, seçilmiş montajları kullanarak Autocycler konsensus oluşturma sürecine devam edin. Kalan Autocycler komutlarını çalıştırarak nihai konsensus plazmid dizisini üretin. Ayrıntılı komut satırı talimatları ve parametre ayarları Ek Materyal'de sağlanmıştır.
- Parlatma: Tam bir montaj oluşturulduktan sonra, montajı Medaka (v2.1.1) ile kesilen uzun okumalarla parlatarak konsensus doğruluğunu önemli ölçüde artırın.
NOT: Ekstra parlatıcı mermiler uzlaşma doğruluğuna yardımcı olsa da, hatalar da ortaya çıkarabilir. Parlatmadan önce yeni kontigi döndürmek için DNAapler gibi bir program kullanmak en iyi uygulamadır; Komutlar Ek Komutlar bölümünde bulunabilir.
5. Yöntem 5: Açıklama
NOT: Bakteriler için birçok etkili notasyon aracı vardır. Kapsamlı bir açıklama için aşağıdaki programlar önerilir.
- Bakta, proteomik analizler için harikadır çünkü şu anda aktif olarak korunmakta ve Prokka 41,42'nin ruhani halefi olarak hizmet vermektedir.
- Replicon tipleme, plazmid hareketlilik tipi ve konjugasyon tiplemeleri için MOB-suitegüvenilirdir 6. MOB-suite, mash mesafesi kullanarak plazmid filogenisini çıkarabilir ve yerleştirme dizisi (IS)öğelerini 43 tespit edebilir.
- COPLA, plazmid taksonomisi için de faydalı bir araçtır. Copla'nın plazmidleri plazmid taksonomik birimlerine sınıflandıran benzersiz yaklaşımı,alanda önerilmektedir 44.
NOT: Plazmid filogenisi tarihsel olarak önemli zorluklar yaratmıştır çünkü plazmid modüler yapısı ve yüksek rekombinasyon sıklığı dizi hizalamalarını zorlaştırır. COPLA, bu zorlukları ortalama nükleotid kimliklerini (ANI) hesaplayarak çözer.
Sonuçlar
Klinik E. coli suşları
Klinik suşlardan plazmidlerin dizilenmesinde ONT'nin kullanımını göstermek için yazarlar, Washington Üniversitesi'nden Dr. Stephen Salipante'nin cömert bir hediyesi olan 10 suş dizilemiştir. Bu suşlar, Washington Üniversitesi TıpMerkezi 45'te rutin klinik bakım sırasında elde edilen 312 kan veya idrar kaynaklı Ekstratestinal Pathogenic E. coli (ExPEC) izolasyonundan oluşan bir koleksiyonun parçasıydı.
Jel hareketlilik testi ile plazmid konjugasyonu ve karakterizasyonu
Araştırmacılar ayrıca alıcı olarak E. coli suşu LMB100'ü kullanarak bir konjugasyon testi yaptılar. Konjugasyon, bir hücrede bulunan plazmidin (donör) başka bir hücreye (alıcı olarak adlandırılır) aktarılmasına yol açan bir süreçtir.46. Transfer, iki hücre arasında fiziksel temas gerektirir ve genellikle alıcı hücrelerde konjugatif plazmid varlığını gösteren belirteçlerle tespit edilir. Bu, yazarların konak suşundaki değişkenleri ortadan kaldırmasına ve plazmid yakalama yöntemiyle elde edilen plazmidlerin dizilenmesi protokolünün kullanılmasını (belirli bir ekolojik nişden plazmidleri profillemek için kullanılan yöntem) göstermesini sağladı. Tüm konjugasyon testleri transkonjugantlar üretti ve donörlerde bir konjugatif plazmid varlığını doğruladı. Yazarların takip ettiği protokol36'da tanımlanmıştır. Grup, donör ve alıcı suşlarında bulunan plazmidleri tespit etti ve bu hareketliliklerini darbe alanı jel elektroforezi (PFGE) ile tahmin etti. On temsilci donör suşunun listesi Tablo 8'de gösterilmekte ve bu plazmidlerin tahmini boyutları üçüncü sütunda listelenmiştir. PFGE jelinin çözünürürlük aralığı dışındaki plazmidler bu tablodan çıkarılmıştır, ancak araştırmacılar ~4kb civarında (gösterilmemiş) birkaç küçük plazmid oluşturabilmiştir.
| Donör Suş | Plazmid | Tahmini PFGE Boyutu | Montaj Süresi | Ortalama Derinlik | BP Sıfır Derinlik | Kapsama %'si | Pozisyonlar Değişti | SR öncesi doğruluk %'si |
| blood_08 _0081 | pblood_08_ 0081_1 | 170000 | 171829 | 100 | 99.941803 | 54 | 0.0314 | 99.9686 |
| blood_08 _0081 | pBlood_08_ 0081_2 | 82000 | 85576 | 46.9 | 0 | 100 | 2 | 99.9977 |
| blood_d-08 _0094 | pBlood_d-08 _0094 | 179000 | 173334 | 382.6 | 3121 | 98.19943 | 2,347 | 98.646 |
| blood_08 _1447 | pBlood_08 _1447 | 97000 | 99624 | 36.2 | 0 | 100 | 0 | 100 |
| blood_10 _0913 | pBlood_10 _0913_1 | 70000 | 71788 | 49 | 4 | 99.994428 | 188 | 99.7381 |
| blood_10 _0913 | pBlood_10 _0913_2 | 112000 | 118727 | 41.2 | 126 | 99.893874 | 276 | 99.7675 |
| blood_1 1_184 | pBlood_11 _184_1 | 150000 | 146583 | 65.1 | 287 | 99.804206 | 134 | 99.9086 |
| blood_11_184 | pBlood_11 _184_2 | 75000 | 74263 | 82.1 | 0 | 100 | 32 | 99.9569 |
| blood_2011 _0238 | pBlood_ 2011_0238 | 170000 | 167286 | 110.9 | 0 | 100 | 0 | 100 |
| upec_108 | pUPEC_108 | 130500 | 131039 | 103.9 | 0 | 100 | 0 | 100 |
| upec_134 | pUPEC_134 | 160500 | 157829 | 169 | 0 | 100 | 0 | 100 |
| upec_271 | pUPEC_271 | 145500 | 144519 | 86 | 33311 | 76.950436 | 1,557 | 98.9226 |
| upec_90 | pUPEC_90 | 70000 | 74624 | 139.8 | 0 | 100 | 6 | 99.992 |
Tablo 8: 10 donör suşundan oluşan bir panel için plazmid boyut tahminleri ve dizileme doğruluk metrikleri. PFGE veya montaj edilmiş ONT donör plazmid dizilerine dayalı plazmid boyut tahminleri listelenmiştir. Sadece ONT ile SR dizisi cilalı plazmid montajlarının çift karşılaştırmaları da doğruluk göstergesi olarak gösterilmektedir. Metrikler şunları içerir: montaj süresi, ortalama derinlik, sıfır derinlik bölgeleri, kapsama yüzdesi, değişen pozisyonlar ve SR öncesi doğruluk yüzdesi.
ONT tabanlı plazmid dizileme çıkış metrikleri
Sıralama süresi 24 saat olarak ayarlanmıştı. Toplamda 24 örnek çoklandı. Her örneklem için teknik veriler, kalite puanı (Q), uzunluk ve kapsama dahil olmak üzere Tablo 9'da listelenmiştir. Nanopore dizileme, analiz edilen tüm örnekler için yeterli okuma çıktısı ve kalitesi sağladı. Tüm kütüphanelerde dizileme her örnek başına ortalama 134.115 okuma üretti, bu da ortalama 576,2 Mb verimle eşleşiyordu. Okumaların ortalama uzunluğu 8.797 bp, ortalama N50 ise 3.693 bp olup, plazmid montajı için yeterli okuma sürekliliği sağladı. Ortalama okuma kalitesi puanı Q16.0, ortalama Q16.6 ve bireysel sayılar Q13.7 ile Q18.0 arasında değişiyordu.
| Dizilenmiş deformasyon | Okuyor (kb) | Bazlar (Mb) | Ortalama Uzunluk | Maksimum uzunluk | Minimum Uzunluk | N50 | Medya Uzunluğu | Mean Q | Medya Q | |
| Blood_08_0081 bağışçı | 109.8 | 261 | 5713 | 508418 | 78 | 2377 | 1351 | 14.5 | 15 | |
| Blood_08_0094 bağışçı | 89.3 | 229 | 4177 | 114948 | 81 | 2565 | 1065 | 13.7 | 14 | |
| Blood_08_1447 bağışçı | 87.5 | 246 | 5041 | 135147 | 75 | 2816 | 1609 | 15.1 | 15.7 | |
| Bblood_10_0913 bağışçı | 247.7 | 1026 | 9260 | 174231 | 70 | 4143 | 1661 | 15.5 | 16.1 | |
| Blood_11_154 bağışçı | 51.5 | 110 | 4172 | 91148 | 73 | 2127 | 1387 | 16.1 | 16.5 | |
| Blood_2011_0238 bağışçı | 16.8 | 42 | 6707 | 104848 | 62 | 2534 | 845 | 15.3 | 15.2 | |
| UPEC_108 bağışçı | 50.6 | 77 | 1915 | 90234 | 67 | 1525 | 1103 | 15.8 | 16.2 | |
| UPEC_134 bağışçı | 50 | 143 | 7110 | 158393 | 72 | 2865 | 1133 | 16 | 16.2 | |
| UPEC_217 bağışçı | 64 | 236 | 7512 | 144275 | 78 | 3678 | 1895 | 17.4 | 17.9 | |
| UPEC_90 bağışçı | 52.9 | 157 | 5666 | 95944 | 72 | 2969 | 1593 | 16.8 | 17.2 | |
| Blood_08_0081 LMB100 transkonjugantı | 53.5 | 119 | 5162 | 225856 | 1 | 2232 | 1009 | 16 | 16.8 | |
| Blood_08_0094 LMB100 transkonjugantı | 160 | 442 | 7257 | 252176 | 1 | 2761 | 1083 | 17.3 | 18.2 | |
| Blood_08_1447 LMB100 transkonjugantı | 238 | 1029 | 10249 | 209221 | 1 | 4320 | 1857 | 17.7 | 18.7 | |
| Blood_10_0913 LMB100 transkonjugantı | 792.3 | 4341 | 11508 | 474325 | 1 | 5479 | 2731 | 17.7 | 18.8 | |
| Blood_11_184 LMB100 transkonjugantı | 42.5 | 281 | 17931 | 146626 | 87 | 6615 | 2448 | 16 | 16.7 | |
| Blood_2011_0238 LMB100 transkonjugantı | 147.7 | 585 | 9000 | 344203 | 1 | 3962 | 1781 | 18 | 18.9 | |
| UPEC_108 LMB100 transkonjugant | 173.4 | 778 | 10127 | 168756 | 80 | 4485 | 2079 | 15.3 | 16.1 | |
| UPEC_134 LMB100 transkonjugant | 105.4 | 667 | 17568 | 349230 | 71 | 6323 | 2232 | 15.5 | 16.3 | |
| UPEC_271 LMB100 transkonjugantı | 74.2 | 336 | 14521 | 342195 | 83 | 4520 | 1306 | 14.6 | 14.8 | |
| UPEC_90 LMB100 transkonjugantı | 75.2 | 418 | 15348 | 225661 | 83 | 5561 | 2016 | 15.7 | 16.4 | |
Tablo 9: 10 donör suşundan oluşan bir panel için dizileme çıktı metriklerinin NanoQ raporu. Dizileme çıktı metrikleri listelenmiştir. Bunlar arasında bağışçılar ve transkonjugantlardan alınan okumalar, bazlar, uzunluk (ortalama, medyan, maksimum ve minimum), uzunluklar, N50 ve Q (ortalama ve medyan) değerleri bulunur.
Plazmid montajı ve doğruluk
Plazmid dizileri Autocycler34 kullanılarak birleştirildi. 10 örnek için birleştirilmiş plazmid dizilerinin boyutları Tablo 8, dördüncü sütunda listelenmiş olup, tüm durumlarda PFGE hareketliliğine dayalı tahminlerle (üçüncü sütunda listelenmiştir) uyumludur. Doğruluk, Medaka ile parlatılmış uzun okuma montajları Medaka (v2.2.0) ve polipola (v0.6.1) montajlarıyla karşılaştırılarak değerlendirildi. Dizi kimliği, MUMmer'den (v3.2.4) dnadiff kullanılarak hesaplandı (Tablo 8). Analiz edilen tüm plazmidlerde (n = 12), montajların ortalama uzunluğu 120,4 kb olup, ortalama 109x dizileme derinliğiyle desteklenmiş, plazmid dizilerinde ortalama %97,9 kapsama oranı olmuştur. Parlatmadan önce, montajlar SR-dizisi cilalı montaja göre ortalama %99,74 ardışıklık göstermiştir.
Kromozom kontaminasyonunun tahmini
Plazmid kapsamını ve kromozomal kontaminasyonu tahmin etmek için, okumalar birleştirilmiş plazmid dizilerine ve E. coli LMB100 kromozom dizisine eşlendi. Basecalled Nanopore okumaları minimap2 (v2.2.6) kullanılarak hizalanmıştır. Ortaya çıkan hizalamalar, sıralanmış BAM dosyaları oluşturmak ve haritalama istatistiklerini hesaplamak için SAMtools (v1.1.7) kullanılarak işlendi. Plazmid kapsamı ve ortalama derinlik, SAMtools kapsamı kullanılarak tahmin edildi. Plazmid dizileme derinliği örnekler arasında değişiklik gösterse de, doğru montaj için gereken minimum kapsamanın (50–70 x) çok üzerinde kaldı. Kromozoma bir kısmı haritalanmış, plazmid çıkarımı sırasında konak DNA'sının taşındığını gösterir (Tablo 10).
| Plazmidler | Toplam Okuma | kromozomal okumalar | % kromozom okumaları | Ortalama Kromozom Kapsamı | Ortalama plazmid kaplaması | P:C Oranı |
| pBlood_08_0081_2 | 53491 | 20116 | 37.61% | 5 | 1068 | 236 |
| pBlood_d-08_0094 | 160024 | 74827 | 46.76% | 37 | 1618 | 44 |
| pBlood_08_1447 | 238031 | 127967 | 53.76% | 62 | 7842 | 127 |
| pBlood_10_0913_1 | 792263 | 221610 | 27.97% | 87 | 7801 | 90 |
| pBlood_10_0913_2 | 792263 | 221610 | 27.97% | 87 | 7772 | 89 |
| pBlood_11_184_1 | 42494 | 15919 | 37.46% | 7 | 1637 | 250 |
| pBlood_11_184_2 | 42494 | 15919 | 37.46% | 7 | 2188 | 335 |
| pBlood_2011_0238 | 147680 | 80526 | 54.53% | 56 | 2965 | 53 |
| pUPEC_108 | 173409 | 107884 | 62.21% | 61 | 4008 | 65 |
| pUPEC_134 | 105418 | 68645 | 65.12% | 29 | 3640 | 127 |
| pUPEC_271 | 74232 | 53554 | 72.14% | 34 | 1202 | 35 |
| pUPEC_90 | 75193 | 30052 | 39.97% | 16 | 4488 | 278 |
Tablo 10: Kromozomal DNA kontaminasyonu tahminleri. Alıcı suşlardan arındırılmış plazmidlerdeki kromozomal kontaminasyon, LMB100 kromozom dizisine okuma eşleşmelerinin plazmid okumalarına göre oranı olarak nicelendirildi. Her plazmid için plazmid okumaları, toplam okumalar, kromozom okumaları, ortalama kromozom kapsamı, ortalama plazmid kapsamı ve P:C oranı listelenmiştir. pBlood_08_0081_1 alıcıda geri getirilemediği için yok olduğunu ve bu tahminlerin alıcıların kromozomal arka planının uniform olması nedeniyle yapıldığını unutmayın.
Kromozomal kontaminasyon, LMB100 kromozom dizisine yapılan okumaların plazmid okumalarına göre oranı olarak nicelendirilmiştir. Kromozom kontaminasyon oranları %72,1 ile %28,0 arasında değişir, ortalama %46,9 (Tablo 10). Yöntem, kromozom kontaminasyonunu aşırı tahmin etme olasılığı yüksek çünkü hem plazmid hem de kromozoma ait okuma eşlemeleri sadece kromozom olarak sayılır, ancak yine de önemli kromozom taşıması olduğunu gösterir. Bu kromozomal transfere rağmen, montaj iş akışı tüm örneklerde PFGE hareketliliğinden tahmin edilen boyutla tutarlı olan tam plazmid dizilerini başarıyla yeniden inşa etti (Tablo 8, üçüncü ve dördüncü sütunlar).
Temsilci donor-alıcı konjugatif plazmid çiftleri
Stütr upec271, 2011 ile 2013 yılları arasında bir idrar örneğinden izole edildi ve filogrup B2 ile ST131 dizisi tipine atandı. PFGE analizi, yaklaşık 145 kb büyüklüğünde bir plazmid bandının varlığını ortaya koydu [Şekil 3A, (Donör)]. Kısa okuma dizisi analizi bir IncF replikonunun varlığını tespit etti.
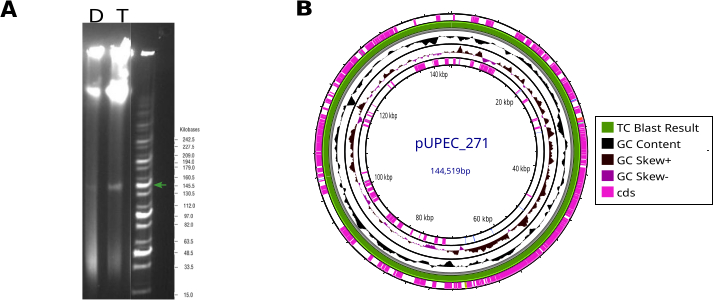
Şekil 3: pUPEC271'in karakterizasyonu. (A)Donör ve transkonjugant PFGE. Donör (D) ve transkonjugant (T) için PFGE bantları gösterilmiştir; yeşil oklar ise pUPEC271'e karşılık gelen plazmid bandını gösterir. PFGE için kullanılan protokol,36. bir çalışmada tanımlanmıştır. (B) pUPEC271 haritası. Transkonjugant donöre karşı patlatıldı ve konsensus (%100 aynı) yeşil halka olarak gösterildi. Bu temsil Proksee48 kullanılarak oluşturuldu. En dıştaki halka CDS'nin konumunu, iki iç halka GC içeriğini ve eğriliğini, en iç halka ise tRNA genlerinin konumunu gösterir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Yazarların pUPEC271 olarak adlandırdığı bu plazmid transferi, daha önce36'da tanımlanan protokol kullanılarak PFGE analiziyle daha da doğrulandı [Şekil 3A, T(transkonjugant)]. Donör upec271 suşundan (pUPEC271_donor) arıtılan plazmid DNA, nanopor kullanılarak dizilenmiştir. PFGE jel üzerindeki bant boyutuyla tutarlı olarak, pUPEC271_donor dizisi 144.519 bp boyutunda bir plazmid ortaya çıkardı (Şekil 3B). Bu plazmid, IncF tipi bir replikona sahipti ve altı farklı antibiyotik sınıfına karşı direnç genleri barındırıyordu ( bkz. Ek Tablo 1). Yazarlar ayrıca bir transkonjuganttan (pUPEC271_TC) DNA'yı arıttılar ve donörün dizisiyle aynı bir dizi elde ettiler. Son montaj, pUPEC271_donor ile karşılaştırıldığında, Şekil 3B'de çizilmiştir. Bu, donördeki konjugatif plazmidin transkonjugant suşa aktarıldığını doğruladı. Teknik veriler Tablo 9'da gösterilmiştir.
Strain Blood_10_0913, birden fazla plazmid içeren bir suş örneğidir. Bu örnek 2008 ile 2013 yılları arasında kandan alındı ve kısa okuma dizileme iki replikonun varlığını gösterdi: bir IncF ve bir IncY replikon. Bu suşun PFGE analizi, sırasıyla yaklaşık 70 ve 110kb değerinde iki plazmid tespit etmiştir (Şekil 4A). Bu, nanopore dizileme ile doğrulandı; iki montaj üretildi; bunlar sırasıyla 71.182 bp ve 111.226 bp boyutunda. Yazarlar bu iki plazmidi pBlood_10_0913_1 ve pBlood_10_0913_2 olarak adlandırdılar (Şekil 4B). Ancak, konjugasyon mekanizmasını taşıyan plazmitlerin kesitindeki geniş dizi homolojisi nedeniyle montajlar başlangıçta daireselleşmeyi başaramamıştır (yaygın homoloji bölümü Şekil 4B'de vurgulanmıştır). Bandaj47 kullanılarak oluşturulan başarısız montaj diyagramı Şekil 4C'de gösterilmiştir. İki plazmidin tam montajı, ancak daha kısa okuma (< 3000 bp) dizilerinin agresif bir şekilde okunmasından sonra mümkün oldu.
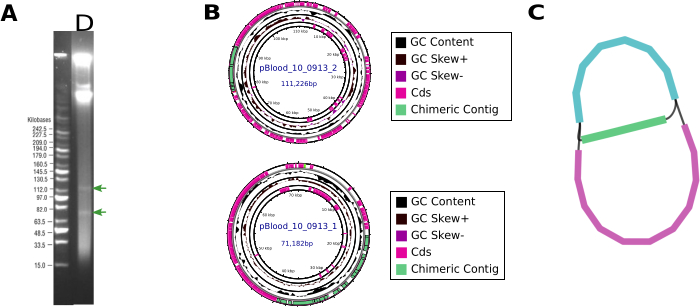
Şekil 4: Blood_10_0913 suşunun plazmidlerinin tanımlanması ve montajı. (A) PFGE. Yeşil oklar plazmid bantlarını gösterir. PFGE için kullanılan protokol,36 (B) Dizi montajında tanımlanmıştır. pBlood_10_0913 örnekte bulunan iki küçük plazmidin pBlood_10_0913_2 ve pBlood_10_0913_2'in montajı. (C) Başarısız montaj. İki ayrı montaj arasında ortak bir dizinin varlığı nedeniyle montaj arızasının temsili. Bu temsil Bandaj47 kullanılarak oluşturulmuştur. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Ek Tablo 1: pUPEC271 tarafından taşınan direnç genleri. PUPEC271 ile ilişkili plazmid boyutu, replikonlar ve direnç genleri gösterilmiştir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Komutlar. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Plazmidlerin tanımlanması ve karakterizasyonu, halk sağlığı, klinik mikrobiyoloji ve mikrobiyal ekoloji için büyük ilgi taşır; çünkü bu genler, ekolojik ortamlarda adaptif genlerin korunması ve yayılmasını kolaylaştırır 1,5 ve hızlandırılmış evrim için platformlargörevi görür 4. NGS teknolojilerinin tanıtılması, mikrobiyal izolasyonların ve popülasyonların genomlarının yüksek verimli dizilenmesine olanak sağladı; ancak tam plazmidlerin veya plazmidden türetilen kontiglerin montaj sonrası tanımlanması genellikle uzun okuma dizilerini gerektiriyor çünkü kısa okuma dizileme verileri okuma boyutundan büyük tekrarlayan bölgeleri çözemiyor. ONT, tüm genom dizileme ve metagenomiğin ötesine geçen uygulamalarla çok popüler uzun okumalı bir dizileme yaklaşımı haline gelmiştir; bu uygulamalar plazmid dizisi doğrulaması, epigenetik modifikasyonların tespit ve karakterizasyonu, RNA dizileme ve tandem gen dizilerinin içsel kararsızlığının değerlendirilmesini içerir (12,49'da incelenmiştir).
Burada, kromozom dizisinin zaten bilindiği veya ilgi çekici olmadığı durumlar için plazmidlerin ONT dizileme süreci için bir iş akışı sunmaktadırlar. Bunun nedeni, plazmid çıkarmanın emek gerektiren, maliyetli ve zaman alıcı olmasıdır (çünkü konak popülasyonu kültürde yetiştirilip işlenmesi gerekir), ayrıca nanopore teknolojisiyle tüm genomun dizilenmesi genellikle genomik bağlamlarını sağlarken tam plazmid montajları elde etmek için yeterlidir. Protokolün faydalı olduğu örnekler arasında, plazmid genetik mühendisliği bağlamında plazmiddizisinin doğrulanması 50,51, WGS24 ile elde edilen plazmid dizilerinin doğruluğunu artırmak veya klinik veya çevresel örneklerden konjugasyon yoluyla yakalanan plazmidlerin karakterizasyonu yer alır.
Klinik ve çevresel örneklerden DNA çıkarımı bazı özelleştirmelere ihtiyaç duyabilir. Burada yazarlar, kullandıkları bazı klinik suşların filtreleri tıkayan bir biyofilm matrisi ürettiğini, bunun birden fazla peletleme adımı gerektirdiğini ve bazen iki filtre eklenmesini gerektirdiğini bildiriyor. Ayrıca, konjugatif plazmidleri dizilemek için, çok kokoli plazmidlerin dizilenmesine göre daha büyük bir kültür hacmine ihtiyaç vardır; çünkü doğal olarak ortaya çıkan orta ve büyük boyutlu plazmidler genellikle düşük plazmidkopya numarası 2'ye sahiptir.
Protokol, 4 kb ile 173 kb arasında plazmidlerin dizilemesine izin vermiştir. Bu aralık, üreticinin teknik özelliklerine tamamen uygundur (2 ile 200 kb arasında). Yakın zamanda, NCBI'da biriktirilen 23.000 plazmid dizisine bakılan bir çalışmada kaynağa bağlı olarak önemli boyut farkları bulundu; insan kökenli plazmidler en küçük medyan boyuta (76 kb), toprak ve bitki plazmidleri ise en büyük olanlara (sırasıyla 215 ve 427 kb) sahipti; Diğer tüm kaynaklardan elde edilen plazmidlerin medyan boyutu 79 ile 147 KB arasında olduğundan, bu protokol çoğu plazmidi kapsamalıdır; bunlar megaplazmidler52 ve toprak veya bitki kökenliplazmidler 3 istisnasıdır.
Yazarlar, plazmid DNA montajlarının doğruluğunu artırmak için plazmid DNA zenginleştirme adımını da eklemiştir. Kromozom DNA'sının büyük miktarda varlığı, dizileme akışı hücresindeki hücrelerin gözeneklerini hedef dışı okumalarla doldurur ve plazmid DNA derinliğini önemli ölçüde azaltır. ARGs 24'ün tespiti için klinik örneklerde plazmid DNA'sının tam bir montajını denemek amacıyla plazmid DNA zenginleştirme aşaması zaten uygulanmıştır. Bu, plazmid montajını yalnızca nanopor dizisi ile tamamlamanın etkinliğinde önemli iyileşmeler gösterdi (kıyaslama ile karşılaştırıldığında %78 tam montaj). Diğer örnekler50,53,54'ü takip etti.
Okuma doğruluğunu artırmak için, bu çalışmalardan ikisi nanopore tarafından geliştirilen "psödoeşleşmiş okumalarda eşleştirilmiş bazlama yöntemi" adlı bir tekniği kullandı50,53. Bu yaklaşım, aynı DNA molekülünün duyu ve antisens zincirlerinden gelen ham elektrik sinyallerinin hizalanmasını içerir ve bu da doğruluğun yaklaşık bir mertebe oranında iyileşmesini sağlar. Aynı molekülün ileri ve geri ipliklerinin tanımlanmasına izin verdiği sürece, psödoeşleşmiş okumalarda eşleştirilmiş bazlama ile uyumludur. Bu nedenle, bilinmeyen plazmid tamamlayıcı örneklerinden arıtılmış veya plazmid karışımı içeren plazmidlerde kullanılamaz. Bir genomdaki plazmid sayısının genellikle 0 ile 7 plazmid arasında olduğunu (özellikle klinik izolatlarda) dikkate alın.
Araştırmacılar örneklerde yüksek düzeyde kromozom kontaminasyonu fark ettiler (Tablo 10). Analiz edilen 10 örneğin kirlenme seviyesi, okuma haritalamasına göre %28 ile %72 arasında değişmiştir. Ancak araştırmacılar bu diziyi kromozom büyüklüğüne göre normalleştirdiklerinde, plazmid dizilerinin kromozomal dizilerden ortalama 144 kat daha fazla olduğu tespit edildi. Bu sayıyı plazmid DNA zenginleştirme seviyesine çevirmek, her örnekteki plazmidlerin plazmid kopya sayısını bilmek gerekir.
MinION akış hücreleri genellikle ~30 GB dizileme çıkışı üretir ve teorik olarak her çalışma başına 96'dan fazla plazmidin dizilenmesini sağlar. Pratikte, çoklu yayın da 96 barkod sınırıyla sınırlandırılır; bu da akış hücresi başına pratik üst sınır olarak 96 plazmid olur. Ancak, kromozomal DNA kirlenmesi ve doğal barkod dengesizliği, örnek başına etkili okuma derinliğini azaltır. Her örnek için yeterli okuma derinliği sağlamak için, daha muhafazakar bir yaklaşım, akış hücresi başına yaklaşık 24 plazmid çoğaltmaktır. Plazmid dizisinin doğru montajı için önerilen derinlik 50 ile 70x32,56 arasındadır. Bu makalede sunulan örnek örneklerde, yazarlar bir akış hücresinde 21 çoklanmış örnek çalıştırmış ve ortalama derinlik (109x) elde etmişler; bu derinlik, akış hücresi başına önerilen örnek optimumuyla iyi uyum sağlamıştır.
Aşırı okuma derinliği ile geçiş/başarısızlık okuma bölümlerinin genel okuma kalitesini değerlendirmede daha az bilgilendirici olduğunu unutmayın. Bunun yerine, uzunluk dağılımından türetilen metrikler veri seti kalitesinin daha net bir temsilini sağlar. Bu metriklerden biri, o veya daha uzun okumaların toplam bazların %50'sini oluşturduğu okuma uzunluğu olarak tanımlanan N50'dir. Bu değer, kalite kontrol adımlarına karşı son derece hassastır. Örneğin, Filtlong gibi araçlarla düşük kaliteli veya kısa okumaları filtrelemek, dağılımın kısa kuyruğunun önemli bir kısmını ortadan kaldırır ve böylece N50 şişirilir. Bu etki Tablo 9'da açıkça görülmektedir.
Yazarlar, plazmid DNA'sını parçalamak için transpozom kullanan ONT'nin Rapid Barcode kitini kullandılar ve bu nedenle plazmidin kısıtlama desenini önceden bilme gerektirmez. Daha önceki bir çalışma, küçük plazmidler (<20 kb) için enzimatik parçalanmanın gerekli olduğunu bulmuştur; çünkü küçük plazmidler çoğu DNA çıkarımı sırasında dairesel kalır ve bu nedenle adaptör ligasyonuiçin serbest uçlar yoktur 54. O çalışmada barkodlar kullanılmadı; bu barkodlar PCR amplifikasyonuyla ek serbest uçlar üretir, bu durumda bu muhtemelen tartışmasız bir konudur. Rutin plazmid doğrulaması için gelişmiş prosedürlerden biri olan OnRamp, montaj için tam boy plazmid okumalarını kullanarak barkod kullanımını önler; bu da örnek hazırlamayıbasitleştirir. Bu durumda, yazarlar üç nedenle barkodları tercih ettiler. İlki, plazmid uzunluğuna bakılmaksızın bir montaj yapmaktır. İkincisi ise kromozomal DNA kontaminasyonunu tolere etmektir. Üçüncüsü, yukarıda belirtildiği gibi, birkaç örneğin çoklu eklenmesi olasılığını açıyor.
Daha önceki bir çalışma, farklı montajcıların toplanmasının, bireysel montaj platformlarına entegre edilmiş önyargıları iptal ederek nihai sonucu iyileştirdiğinibelirtmiştir 24. Bu meta-analiz, yazarların kullandığı montaj programı Autocycler34'e entegre edilmiş bir özelliktir. Önceki versiyonu olan Trycycler57'ye göre, Autocycler biraz daha otomatiktir; okumaların birkaç alt kümesini kullanır ve (daha önce belirtildiği gibi) daha doğru bir uzlaşma montajı oluşturmak için birden fazla montajcı ile montajlar yapar. Ancak, çoğu montajcı, en iyileri bile, örneğinFlye 28, Canu 29 ve Raven30, geniş dizi homolojisine sahip plazmidlerin varlığında, yanlışlıkla plazmid dizilerini birleştirmede veya tek bir plazmidin birden fazla kopyasını üretmede zorlanır ve küçük plazmidlerineksikliğine yatkındır (ayrıca Şekil 4C'ye bakınız). Bu durumda, düşük kaliteli okumaları kesip kısa okumaların kaldırılması, kimerik sorunların çözülmesine yol açabilir.
Dizileme protokollerinin genel doğruluğunu belirlemek için, yazarlar sadece ONT'ye yönelik montajları, uzun okuma ve kısa okuma kombinasyonlarıyla parlatılmış montajlarla karşılaştırdılar; bu montajlar (PacBio verileri dışında) mevcut altın standarttır. Yazarlar ayrıca mevcut plazmid sayısını ve tahmini boyutlarını gösteren jel verilerine sahipti (Tablo 8, üçüncü sütun). Araştırmacılar, 10 örnekte bulunan 13 plazmidin tamamını başarıyla birleştirerek birleştirilen dizilerle uyumlu boyutlar elde ettiler. Bu oldukça başarılıdır, çünkü LR-dizi montajcılar genellikle yapısal olarak karmaşık dizilere sahip plazmidleri birleştiremezler. Daha ayrıntılı bir düzeyde, iki dizi seti arasındaki çift karşılaştırmalar değişken bir doğruluk seviyesini göstermiştir (Tablo 8). Plazmid montajlarının beşinde, ONT montajlarında kapsama alanı olmayan alanlar vardı; muhtemelen sadece ONT'ye özgü dizi montajı sırasında eklenen dizinin yapay olarak bir sonucuydu. Diğer yedisinden üçü tek nükleotid polimorfizmaları gösterdi; çift farklar %0,0023 ile %0,05 arasında değişirken, dördü mükemmel uyum gösterdi. Doğruluk seviyesi, plazmid DNA zenginleştirme veya dizileme derinliği seviyesiyle ilişkili görünmemektedir, ancak bir numunede birden fazla plazmid bulunması, muhtemelen birden fazla plazmid olması dizis karmaşıklığını artırır (Tablo 8). Özetle, iş akışı plazmid dizisi verimini ve doğruluğunu optimize etmek için tasarlanmıştır. Plazmid dizilerini bir ýere jemleyebilse de, nükleotid seviyesinde değişken bir doğruluk seviyesi üretir. Protokol, geniş boyut aralığındaki plazmidleri dizilemek için kullanılabilir, en az %72 kromozomal DNA kontaminasyonuna tolere sağlar ve plazmid boyutuna ve akış hücresi durumuna bağlı olarak tek bir akış hücresinde en az 24 plazmid barındırabilir.
Açıklamalar
Yazarların açıklayacak hiçbir şeyi yok.
Teşekkürler
Washington Üniversitesi'nden Steve Salipante'ye,45'te yayımlanan klinik E. coli türlerini cömertçe paylaştığı için çok minnettarız. Bu çalışma, UCSC'den MC'ye Yenilik ve Girişimcilik Gelişimi Direktörlüğü için araştırma destek fonları ve Kaliforniya Üniversitesi Alianza MX tarafından sağlanan "Meksika'da Yüksek Yüklü ve Savunmasız Nüfuslar arasında Tüberküloz İzolalarının Genomik Profillenmesi: Bulaşma ve İlaç Direnci İçeri İçgörüleri" adlı MC bursuyla kısmen desteklendi.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1.5 mL Eppendorf DNA LoBind tube | Sigma Aldrich | EP022431081 | Başka bir marka ile değiştirilebilir |
| 1.5 mL tube racks | Thermo Fisher Scientific | 22-313630 | Başka bir marka ile değiştirilebilir |
| 15 mL conical tubes | FALCON | 352096 | Başka bir marka ile değiştirilebilir |
| 15 mL tube racks | Thermo Fisher Scientific | 8850 | Başka bir marka ile değiştirilebilir |
| 2.0 mL microcentrifuge tubes | Fisherbrand | 05-408-138 | Başka bir marka ile değiştirilebilir |
| 250 mL sterile flasks | PYREX | 5320 | Başka bir marka ile değiştirilebilir |
| Carbenicillin | GOLD BIOTECHNOLOGY | C-103-50 | Başka bir marka ile değiştirilebilir |
| Centrifuge | Eppendorf | 5424R-PR-R | Başka bir marka ile değiştirilebilir |
| Centrifuge | Eppendorf | 5810R-P-R | Başka bir marka ile değiştirilebilir |
| Centrifuge bottles | Sigma Aldrich | B1283-4EA | Başka bir marka ile değiştirilebilir |
| Disposable Inoculating Loops: 1 µL | Fisherbrand | 22-363-595 | Başka bir marka ile değiştirilebilir |
| Electronic Digital Scale | Denver Instrument | APX-2001 | Başka bir marka ile değiştirilebilir |
| Ethanol | Fisher Scientific | 04-355-720 | Başka bir marka ile değiştirilebilir |
| Ethanol-resistant markers | Sharpie | 37001; 37002; 37003 | Başka bir marka ile değiştirilebilir |
| Flow cell (R10.4.1) | Oxford Nanopore Technologies | FLO-MIN114 | |
| Flow Cell Wash Kit | Oxford Nanopore Technologies | EXP-WSH004 | |
| Gloves | X-GEN | 44-100M | Herhangi bir nitril eldiven markası kullanılabilir |
| Ice bucket | Thermo Fisher Scientific | 432128 | Başka bir marka ile değiştirilebilir |
| Isopropanol | Fisher Scientific | BP26184 | Başka bir marka ile değiştirilebilir |
| MinION Sequencing Device | Oxford Nanopore Technologies | MIN-101B | |
| Native Barcoding Kit 96 V14 | Oxford Nanopore Technologies | SQK-NBD114.96 | |
| NucleoBond Xtra MIDI Plasmid DNA Extraction Kit | Takara | 740410.5 | |
| PCR tube racks | AXYGEN | R96PCRFSP | Başka bir marka ile değiştirilebilir |
| PCR tubes: (0.2 mL) | AXYGEN | PCR-02-C | Başka bir marka ile değiştirilebilir |
| Program autocycler v0.5.2 | Ryan Wick / University of Melbourne | ||
| Program bcftools v1.22 | Wellcome Sanger Institute (HTSlib / Samtools team) | ||
| Program bwa v0.7.19 | Heng Li, originally at the Broad Institute | ||
| Program canu v2.3 | University of California, Davis & Pacific Biosciences collaborators | ||
| Program flye v2.9.6 | University of California, San Diego (Pavel Pevzner lab) | ||
| Program medaka v2.1.1 | Oxford Nanopore Technologies | ||
| Program metamdbg v1.2 | INRIA | ||
| Program miniasm v0.3 | Heng Li | ||
| Program minimap2 v2.28 | Heng Li | ||
| Program minipolish v0.2.0 | Ryan Wick / University of Melbourne | ||
| Program porechop v0.2.4 | Ryan Wick / University of Melbourne | ||
| Program racon v1.5.0 | Genome Institute of Singapore | ||
| Program samtools v1.22.1 | Wellcome Sanger Institute (HTSlib / Samtools project) | ||
| Qubit™ 4 Fluorometer | Invitrogen | Q33226 | |
| Qubit™ Assay Tubes | Invitrogen | Q32856 | |
| Rapid Barcoding Kit 24 and 96 V14 | Oxford Nanopore Technologies | SQK-RBK114.96 | |
| Set of micropipettes that dispense between 1 – 10 μL (P10), 2 – 20 μL (P20), 20 – 200 μL (P200) and 200 – 1000 μL (P1000) | RAININ | 17008648; 17008650; 17008652; 17008653 | Micropipetler kalibre edilmelidir |
| Spectrophotometer | Thermo Scientific | 335905P | Başka bir marka ile değiştirilebilir |
| Sterilized tips for 10 μL, 200 μL and 1000 μL | Eclipse | 1011-260-000-9; 1018-260-000; 1019-260-000-9 | |
| Thermal cycler C1000 Touch | Bio-Rad | 1851196 | Başka bir marka ile değiştirilebilir |
| Water bath | Thermo Scientific | 51221052 | Başka bir marka ile değiştirilebilir |
Kaynaklar
- Finks, S. S., Martiny, J. B. H. Plasmid-encoded traits vary across environments. mBio. 14 (1), e0319122(2023).
- Ramiro-Martinez, P., de Quinto, I., Lanza, V. F., Gama, J. A., Rodriguez-Beltran, J. Universal rules govern plasmid copy number. Nat Commun. 16 (1), 6022(2025).
- Redondo-Salvo, S., et al. Pathways for horizontal gene transfer in bacteria revealed by a global map of their plasmids. Nat Commun. 11 (1), 3602(2020).
- Rodriguez-Beltran, J., DelaFuente, J., Leon-Sampedro, R., MacLean, R. C., San Millan, A. Beyond horizontal gene transfer: the role of plasmids in bacterial evolution. Nat Rev Microbiol. 19 (6), 347-359 (2021).
- Castaneda-Barba, S., Top, E. M., Stalder, T. Plasmids, a molecular cornerstone of antimicrobial resistance in the one health era. Nat Rev Microbiol. 22 (1), 18-32 (2024).
- Robertson, J., Bessonov, K., Schonfeld, J., Nash, J. H. E. Universal whole-sequence-based plasmid typing and its utility to prediction of host range and epidemiological surveillance. Microb Genom. 6 (10), (2020).
- Conlan, S., et al. Single-molecule sequencing to track plasmid diversity of hospital-associated carbapenemase-producing Enterobacteriaceae. Sci Transl Med. 6 (254), 254ra126(2014).
- Zankari, E., et al. Identification of acquired antimicrobial resistance genes. J Antimicrob Chemother. 67 (11), 2640-2644 (2012).
- Eyre, D. W., et al. WGS to predict antibiotic MICs for Neisseria gonorrhoeae. J Antimicrob Chemother. 72 (7), 1937-1947 (2017).
- Arredondo-Alonso, S., Willems, R. J., van Schaik, W., Schurch, A. C. On the (im)possibility of reconstructing plasmids from whole-genome short-read sequencing data. Microb Genom. 3 (10), e000128(2017).
- Rhoads, A., Au, K. F. PacBio sequencing and its applications. Genomics Proteomics Bioinformatics. 13 (5), 278-289 (2015).
- Zhang, T., et al. Nanopore sequencing: flourishing in its teenage years. J Genet Genomics. 51 (12), 1361-1374 (2024).
- González, A., Fullaondo, A., Odriozola, A. Why are long-read sequencing methods revolutionizing microbiome analysis? Microorganisms. 13 (8), (2025).
- Wick, R. R., Holt, K. E. Polypolish: Short-read polishing of long-read bacterial genome assemblies. PLoS Comput Biol. 18 (1), e1009802(2022).
- Delahaye, C., Nicolas, J. Sequencing DNA with nanopores: Troubles and biases. PLoS One. 16 (10), e0257521(2021).
- Watson, M., Warr, A. Errors in long-read assemblies can critically affect protein prediction. Nat Biotechnol. 37 (2), 124-126 (2019).
- De Maio, N., et al. Comparison of long-read sequencing technologies in the hybrid assembly of complex bacterial genomes. Microb Genom. 5 (9), (2019).
- Lerminiaux, N., Fakharuddin, K., Mulvey, M. R., Mataseje, L. Do we still need Illumina sequencing data? Evaluating Oxford Nanopore Technologies R10.4.1 flow cells and the Rapid v14 library prep kit for Gram-negative bacteria whole genome assemblies. Can J Microbiol. 70 (5), 178-189 (2024).
- Dabernig-Heinz, J., et al. A multicenter study on accuracy and reproducibility of nanopore sequencing-based genotyping of bacterial pathogens. J Clin Microbiol. 62 (9), e0062824(2024).
- Sereika, M., et al. Oxford Nanopore R10.4 long-read sequencing enables the generation of near-finished bacterial genomes from pure cultures and metagenomes without short-read or reference polishing. Nat Methods. 19 (7), 823-826 (2022).
- Wick, R. R., Judd, L. M., Holt, K. E. Assembling the perfect bacterial genome using Oxford Nanopore and Illumina sequencing. PLoS Comput Biol. 19 (3), e1010905(2023).
- Paterson, D. L. Resistance in gram-negative bacteria: enterobacteriaceae. Am J Med. 119 (1), discussion S62-70 S20-S28 (2006).
- Peter, S., et al. Tracking of antibiotic resistance transfer and rapid plasmid evolution in a hospital setting by nanopore sequencing. mSphere. 5 (4), (2020).
- George, S., et al. Resolving plasmid structures in Enterobacteriaceae using the MinION nanopore sequencer: assessment of MinION and MinION/Illumina hybrid data assembly approaches. Microb Genom. 3 (8), e000118(2017).
- Dong, N., Yang, X., Zhang, R., Chan, E. W., Chen, S. Tracking microevolution events among ST11 carbapenemase-producing hypervirulent Klebsiella pneumoniae outbreak strains. Emerg Microbes Infect. 7 (1), 146(2018).
- Lemon, J. K., Khil, P. P., Frank, K. M., Dekker, J. P. Rapid nanopore sequencing of plasmids and resistance gene detection in clinical isolates. J Clin Microbiol. 55 (12), 3530-3543 (2017).
- Linde, J., et al. Comparison of Illumina and Oxford Nanopore Technology for genome analysis of Francisella tularensis, Bacillus anthracis, and Brucella suis. BMC Genomics. 24 (1), 258(2023).
- Bickhart, D. M., et al. Generating lineage-resolved, complete metagenome-assembled genomes from complex microbial communities. Nat Biotechnol. 40 (5), 711-719 (2022).
- Koren, S., et al. Canu: scalable and accurate long-read assembly via adaptive k-mer weighting and repeat separation. Genome Res. 27 (5), 722-736 (2017).
- Vaser, R., Sikic, M. Time-and memory-efficient genome assembly with Raven. Nat Comput Sci. 1 (5), 332-336 (2021).
- Lynch, M. D., Neufeld, J. D. Ecology and exploration of the rare biosphere. Nat Rev Microbiol. 13 (4), 217-229 (2015).
- Kruasuwan, W., et al. Comparative evaluation of commercial DNA isolation approaches for nanopore-only bacterial genome assembly and plasmid recovery. Sci Rep. 14 (1), 27672(2024).
- Ulrich, J. U., et al. Nanopore adaptive sampling effectively enriches bacterial plasmids. mSystems. 9 (3), e0094523(2024).
- Wick, R. R., Howden, B. P., Stinear, T. P. Autocycler: long-read consensus assembly for bacterial genomes. Bioinformatics. 41 (9), (2025).
- NucleoBond Xtra Plasmid DNA Purification User Manual. , Takara Bio USA. Available from: https://www.takarabio.com/documents/User%20Manual/NucleoBond%20Xtra%20Plasmid%20DNA%20Purification%20User%20Manual_Rev_15.pdf?srsltid=AfmBOorkdYVlr34yclNUgmBCn4imrn-gbvTafmkD2Yrnnch6fH-K_VwZ (2019).
- Mota-Bravo, L., et al. Detection of horizontal gene transfer mediated by natural conjugative plasmids in E. coli. J Vis Exp. (193), (2023).
- Hancock, V., Witso, I. L., Klemm, P. Biofilm formation as a function of adhesin, growth medium, substratum, and strain type. Int J Med Microbiol. 301 (7), 570-576 (2011).
- Hung, C., et al. Escherichia coli biofilms have an organized and complex extracellular matrix structure. mBio. 4 (5), e00645-e00713 (2013).
- Qubit 4 assays quick reference (Pub. No. MAN0017210 C.0). , Thermo Fisher Scientific. (2025).
- Rapid barcoding sequencing kit 96 v14. , Oxford Nanopore Technologies. Available from: https://store.nanoporetech.com/us/rapid-barcoding-sequencing-kit-96-v14.html (2026).
- Schwengers, O., et al. Bakta: rapid and standardized annotation of bacterial genomes via alignment-free sequence identification. Microb Genom. 7 (11), (2021).
- Seemann, T. Prokka: rapid prokaryotic genome annotation. Bioinformatics. 30 (14), 2068-2069 (2014).
- Singh, H., et al. Integrons: the hidden architects of bacterial adaptation, evolution, and the challenges of antimicrobial resistance. Antonie Van Leeuwenhoek. 118 (7), 90(2025).
- Redondo-Salvo, S., et al. COPLA, a taxonomic classifier of plasmids. BMC Bioinformatics. 22 (1), 390(2021).
- Salipante, S. J., et al. Large-scale genomic sequencing of extraintestinal pathogenic Escherichia coli strains. Genome Res. 25 (1), 119-128 (2015).
- Couturier, A., et al. Real-time visualisation of the intracellular dynamics of conjugative plasmid transfer. Nat Commun. 14 (1), 294(2023).
- Wick, R. R., Schultz, M. B., Zobel, J., Holt, K. E. Bandage: interactive visualization of de novo genome assemblies. Bioinformatics. 31 (20), 3350-3352 (2015).
- Grant, J. R., et al. Proksee: in-depth characterization and visualization of bacterial genomes. Nucleic Acids Res. 51 (W1), W484-W492 (2023).
- MacKenzie, M., Argyropoulos, C. An Introduction to nanopore sequencing: past, present, and future considerations. Micromachines (Basel). 14 (2), (2023).
- Emiliani, F. E., Hsu, I., McKenna, A. Multiplexed assembly and annotation of synthetic biology constructs using long-read nanopore sequencing. ACS Synth Biol. 11 (7), 2238-2246 (2022).
- Brown, S. D., Dreolini, L., Wilson, J. F., Balasundaram, M., Holt, R. A. Complete sequence verification of plasmid DNA using the Oxford Nanopore Technologies' MinION device. BMC Bioinformatics. 24 (1), 116(2023).
- Hall, J. P. J., Botelho, J., Cazares, A., Baltrus, D. A. What makes a megaplasmid? Philos Trans R Soc Lond B Biol Sci. 377 (1842), 20200472(2022).
- Brown Kav, A., Benhar, I., Mizrahi, I. A method for purifying high-quality and high-yield plasmid DNA for metagenomic and deep sequencing approaches. J Microbiol Methods. 95 (2), 272-279 (2013).
- Mumm, C., et al. Multiplexed long-read plasmid validation and analysis using OnRamp. Genome Res. 33 (5), 741-749 (2023).
- Balbuena-Alonso, M. G., et al. Genomic analysis of plasmid content in food isolates of E. coli strongly supports its role as a reservoir for the horizontal transfer of virulence and antibiotic resistance genes. Plasmid. 123-124, 102650(2022).
- Zhao, W., et al. Oxford nanopore long-read sequencing enables the generation of complete bacterial and plasmid genomes without short-read sequencing. Front Microbiol. 14, 1179966(2023).
- Wick, R. R., et al. Trycycler: consensus long-read assemblies for bacterial genomes. Genome Biol. 22 (1), 266(2021).
- Johnson, J., Soehnlen, M., Blankenship, H. M. Long read genome assemblers struggle with small plasmids. Microb Genom. 9 (5), (2023).
- Boostrom, I., Portal, E. A. R., Spiller, O. B., Walsh, T. R., Sands, K. Comparing long-read assemblers to explore the potential of a sustainable low-cost, low-infrastructure approach to sequence antimicrobial resistant bacteria with Oxford Nanopore sequencing. Front Microbiol. 13, 796465(2022).
Yeniden basım ve izinler
