Bu çalışma, entegre biyoinformatik ve deneysel doğrulama yoluyla tip 2 diyabet ve aterosklerotik kardiyovasküler hastalığın altında yatan ortak genleri, biyolojik yolları, bağışıklık ilişkilerini ve potansiyel terapötik hedefleri belirledi.
Araştırma makalesi
Tip 2 diyabet mellitus ve aterosklerotik kardiyovasküler hastalıklarda yaygın moleküler mekanizmalar ve aday ilaç hedefleri
Bu makalede
Özet
Özet
Bu çalışma, tip 2 diyabet hastalığı (T2DM) ile aterosklerotik kardiyovasküler hastalık (ASCVD) arasındaki komorbiditenin altında yatan mekanizmaları incelemiş ve potansiyel terapötik hedefleri belirlemiştir. T2DM ve ASCVD arasında yaygın farklı olarak ifade edilen genler (C-DEG) GSE78721 ve GSE12288 veri setlerinden çıkarıldı. Gen Ontolojisi (GO) ve Kyoto Genler ve Genomlar Ansiklopedisi (KEGG) yol zenginleştirme analizleri, protein-protein etkileşimi (PPI) ağ inşası yapımları, merkez gen tanımlaması ve İlaç-Gen Etkileşim Veritabanı (DGIdb) analizleri gerçekleştirildi. Hub C-DEG'ler ile bağışıklık sızdıran hücreler arasındaki ilişki CIBERSORT yöntemiyle analiz edildi. Hub C-DEG'lerin ifade seviyeleri qRT-PCR ve Western blot analizleriyle nicelendirildi. Toplamda 32 C-DEG, 20'si yukarı regülasyonlu ve 12'si aşağı regülasyonlu genlerden oluşuyordu. C-DEG'ler ağırlıklı olarak viral miyokardit, aritmogenik sağ ventriküler kardiyomiyopati, hipertrofik kardiyomiyopati ve dilatasyona dayalı kardiyomiyopati gibi önemli yollarda zenginleştirildi. PPI analizi, her iki veri setinde de 29 düğüm ve 39 kenar tespit etti; bu da her iki veri setinde sekiz merkez C-DEG'nin (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C ve CS) tanımlanmasına yol açtı. Ayrıca, merkez C-DEG'ler (TOP3A, SLPI, NCF4, PRF1 ve PLAU) immigrasyon infiltratif hücre seviyeleriyle önemli korelasyon göstermiştir. Bu merkez C-DEG'leri hedef alan ilaçlar, T2DM ve ASCVD tedavisi için umut vaat eden adaylar sunar. Ayrıca, hem mRNA hem de protein seviyelerinde hub C-DEG'lerin ekspresyonu T2DM ve ASCVD hastalarında doğrulandı. Entegre bir biyoinformatik analiz, T2DM ve ASCVD için aday terapötik hedeflerin, mekanizmaların ve ilaçların taramasını kolaylaştırarak bu durumlar için moleküler tedavilere yeni bakış açıları sundu.
Giriş
Diyabet (DM), çeşitli genetik ve çevresel faktörlerden etkilenen karmaşık etiyolojiye sahip kronik bir hastalıktır ve şu anda dünya çapında tahmini 463 milyon kişiyi etkilemektedir; 2045 yılına kadar bu sayısının 700 milyona çıkması öngörülmektedir 1,2. Tip 2 diyabet mellitus (T2DM), beta-hücre yetmezliğinden kaynaklanan insülin direnci ve göreceli insülin eksikliğiyle karakterize edilen çok faktörlü bir durumdur; bu durum hiperglisemi ve dislipidemiye yol açar ve DMvakalarının %90'ını oluşturur 3,4,5. İnsülin direnci, aterosklerotik kardiyovasküler hastalık (ASCVD) gelişimini birlikte kolaylaştıran ve prognozunu etkileyebilecek birçok kardiyovasküler metabolik anormalliğin önemli bir öncüsüolarak hizmet eder 6,7. Koroner arter hastalığı (CAD) öncelikle aterosklerotik maddenin ilerleyici birikimi sonucu oluşur; bu da luminal daralma ve kan akışıtıkanıklığına yol açar 8. Ateroskleroz, hiperkolesterolemi ve diyabet 9,10 dahil olmak üzere birçok faktör tarafından tetiklenir. T2DM ve CAD ile ilişkili önemli insan ve finansal yükler ile uzun vadeli yönetimlerindeki zorluklar, etkili önleyici stratejilere acil ihtiyaç olduğunu vurgulamaktadır.
CAD ve eşzamanlı T2DM olan hastalar kalp olayları için belirgin şekilde daha yüksek risklekarşı karşıya kalmaktadır 11. Kardiyovasküler hastalık (KVH), T2DM'nin yaygın bir komplikasyonudur ve T2DM hastaları arasında ölümlerin başlıca nedeni olarak görülür; yaklaşık %32,2'siCVD 12'den etkilenmiştir. LoDoCo2 alt çalışması, eşzamanlı T2DM'nin kronik CAD popülasyonlarında büyük yan kardiyovasküler olayların artan riskiyle korelasyon olduğunudoğrulamaktadır 13. T2DM olan bireylerASCVD 14,15 için yüksek risk altındadır ve kronik CAD'i olanlar da diyabete sahip olanlar, sonraki kardiyovasküler olaylar için önemli ölçüde daha yüksek risktaşır 16; bu da yenilikçi tedavi seçeneklerine kritik bir karşılanmamış ihtiyacı ortaya koyuyor.
Giderek daha fazla araştırma grubu, çeşitli veri tabanlarından alınan transkriptomik verilerin kapsamlı analizleriyle T2DM ve ASCVD'de yeni farklı şekilde ifade edilen genleri (DEG) tarıyor. Çabalar, bu hastalıklar arasındaki bağlantıyı aydınlatmaya ve etkili biyolojik işlevleri belirlemeye odaklanmaktadır. Son biyoinformatik çalışmalar, T2DM'yi diğer durumlarla ilişkili olarak incelemiştir; örneğin, Song ve ark. T2DM ileosteoartrit 17 arasında ortak DEG'ler tanımladı, Castillo-Velázquez ve diğerleri Alzheimer hastalığı ile DM18 arasındaki ilişkiyi öngördü ve T2DM ile polikistik ovary sendromunda önemli genler ve yollar biyoinformatik analizlerletanındı 19. Ancak, T2DM ile ASCVD arasındaki moleküler mekanizmalar hâlâ yeterince anlaşılmamaktadır; bu da her iki durumun ilerlemesini tedavi etmek için yeni potansiyel terapötik hedeflerin belirlenmesinin önemini vurgulamaktadır.
Bu çalışma, GSE78721 (T2DM) ve GSE12288 (ASCVD) veri setlerinden transkriptomik verilerin entegre biyoinformatik analizini yaparak T2DM ile ASCVD arasında paylaşılan moleküler yolları ve potansiyel terapötik hedefleri sistematik olarak belirlemeyi amaçlamaktadır. Bu veri setleri, her hastalık için eşleştirilmiş hasta ve kontrol örnekleri sağlamaları nedeniyle seçildi ve sağlam karşılaştırmalı analiz mümkün kılmak için karşılaştırılabilir mikroarray platformları kullanıldı. Mevcut yaklaşım, yaygın DEG'lerin (C-DEG) tanımlanmasını, fonksiyonel zenginleştirme ve protein etkileşim analizlerinin yapılmasını, bağışıklık sızıntısıyla ilişkilerinin değerlendirilmesini ve etkileşimli ilaçların tahmin edilmesini içeriyordu. Ayrıca, ön deneysel doğrulama yapıldı. Bu çalışma, T2DM ve ASCVD'nin eşlik hastalığını anlamak için yeni içgörüler ve aday hedefler sunmaktadır.
Protokol
Bu çalışma protokolü, Ningxia Tıp Üniversitesi Kurumsal İnceleme Kurulu tarafından etik alanında incelenip onaylandı (İç İnceleme Kurulu Referans Numarası: Etik [2023]-YCSKT-002) ve Helsinki Bildirgesi'nde belirtilen ilkelere uygun oldu. Çalışmaya katılan tüm hastalardan yazılı onay alındı.
T2DM ve ASCVD için ifade veri kaynakları
T2DM ve ASCVD için gen ifade verileri, sırasıyla GEO veritabanından alınan GSE78721 ve GSE12288 veri setlerinden elde edilmiştir. Her iki veri seti de [PrimeView] Affymetrix İnsan Gen İfadesi Dizisi ve [HG-U133A] Affymetrix İnsan Genomu U133A Dizisi platformlarından mikroarray verilerini kullandı. GSE78721 veri seti, 68 T2DM hastası ve 62 normal numuneden alınan ifade verilerini içeriyordu ( detaylar Ek Tablo 1'de), GSE12288 veri seti ise 110 ASCVD örneği ve 112 normal kontrolden oluşan ifade verilerini içeriyordu (detaylar Ek Tablo 2'de). Gen probları, platform açıklama bilgilerine dayanarak karşılık gelen gen sembollerine dönüştürüldü.
T2DM ve ASCVD'de farklı şekilde eksprese edilen genlerin tanımlanması
GEO veritabanından veriler indirildikten sonra, T2DM ve ASCVD için ham ifade matrisleri "limma" yazılım paketiyle düzeltilip normalleştirildi. DEG taraması için P < 0.05 eşik uygulandı. Diferansiyel ifade sonuçları, 'ısı haritası' ve 'ggplot2' R paketleri kullanılarak görselleştirilerek sırasıyla ısı haritası ve volkan grafiki oluşturuldu. T2DM ile ASCVD arasındaki C-DEG'ler bir Venn diyagramı aracılığıyla tanımlandı.
Gen Ontolojisi (GO) fonksiyonel ve Kyoto Genler ve Genomlar Ansiklopedisi (KEGG) C-DEG'lerin yol zenginleştirme analizleri
Biyolojik fonksiyonlar ve yollar, GO ve KEGG yol zenginleştirme analizleriyle belirlendi. R paket organizasyonu. Hs.eg.db, C-DEG isimlerini gen kimliklerine dönüştürmek için kullanıldı ve C-DEG'lerin ortak biyolojik fonksiyonlarını incelemek için R paketleri clusterProfiler, enrichplot, ggplot2 ve GOplot kullanılarak GO zenginleştirme analizi yapıldı. Daha sonra, T2DM ve ASCVD'nin komorbiditesinin altında yatan moleküler mekanizmalarda rol alan ortak önemli yolları belirlemek için KEGG analizi yapıldı. GO ve KEGG zenginleştirme sonuçları, gen sayıları, fonksiyonel tanımlar ve P değerlerini gösteren bar grafiklerde sunulmuş, istatistiksel anlamlılık P < 0.05 olarak tanımlanmıştır.
C-DEG'lerin protein-protein etkileşimi (PPI) ağ analizi
Bu çalışmada C-DEG'ler ve hub genler ortak genler olarak tanımlandı. Bu paylaşılan genler arasındaki fonksiyonel ilişkileri değerlendirmek için, STRING veritabanı (https://string-db.org) kullanılarak bir PPI ağı oluşturuldu. Analiz, "SEARCH" fonksiyonu altında "Çoklu proteinler" seçilip C-DEG isimlerinin girilmesiyle ve türleri "Homo sapiens" olarak belirterek başladı. C-DEG'ler için temel parametreler, PPI düzenleyici ağını gösterecek şekilde yapılandırıldı. PPI ağının görselleştirmesi, Cytoscape yazılımı (sürüm 3.9.1) (https://apps.cytoscape.org/) kullanılarak yapıldı ve C-DEG'ler arasındaki etkileşimlerin grafiksel temsili sağlandı. Hub C-DEG'ler, Cytoscape'teki CytoHubba eklentisi kullanılarak PPI ağı içinde, Degree sıralama algoritmasına dayanarak tanımlanmıştır.
İmmün hücre infiltrasyon analizi
T2DM grubu ile normal kontrol grubu arasındaki bağışıklık hücre infiltrasyonundaki farkları incelemek için, çeşitli bağışıklık sızdıran hücre tiplerinin bolluğunu değerlendirmek için CIBERSORT yöntemi kullanıldı. Daha sonra Wilcoxon test algoritması, bu sızma immün hücrelerinin T2DM ve kontrol örnekleri arasındaki oranlarını karşılaştırmak için uygulandı ve gözlemlenen farkların değerlendirilmesini kolaylaştırdı. Verilerin görselleştirilmesi keman grafikleriyle sağlandı. C-DEG'ler ile bağışıklık sızdıran hücreler arasındaki korelasyonu doğrulamak için, limma, scales, tidyverse ve ggplot2 gibi R paketleri kullanılarak Spearman korelasyon katsayıları hesaplanmıştır. Bu adım, C-DEG ekspresyonu ile bağışıklık hücresi sızma seviyeleri arasındaki ilişkiyi niceleştirdi ve sonuçlar ısı haritası olarak gösterildi. 0.05'in altında olan bir P-değeri istatistiksel olarak anlamlı olarak kabul edildi.
Merkez C-DEG'lerin potansiyel hedefli ilaçlarla etkileşim analizi
İlaç-Gen Etkileşim Veritabanı (DGIdb), onaylanmış ve potansiyel terapötik ajanların ilaç-gen etkileşimleri ve genetik profillerinin kapsamlı bir kataloğunu sunar. Bu çalışmada, merkez C-DEG'lerin listesi veritabanına girildi ve merkez C-DEG'ler ile potansiyel hedefli ilaçlar arasındaki etkileşim bilgisi alındı ve bu bilgiler Cytoscape yazılımı kullanılarak görselleştirildi.
Klinik örneklerle çekirdek genlerin deneysel doğrulanması
Çekirdek genleri deneysel olarak doğrulamak için, klinik deneklerden periferik kan örnekleri alındı. Çalışma grubu bir deneysel grup ve bir kontrol grubunu içeriyordu. Deneysel grup, hem T2DM hem de ASCVD tanısı konmuş 15 hastadan oluşuyordu ve bu hastalık eşzamanlı bir durumu temsil ediyordu. Kontrol grubu, diyabet, CVD veya diğer büyük sistemik hastalıklar öyküsü olmayan 10 yaş ve cinsiyet uyumlu sağlıklı gönüllüden oluşuyordu. Deneysel gruptaki tüm hastalar, T2DM ve ASCVD için belirlenmiş klinik yönergeler uyarınca kesin olarak teşhis edildi.
Nicel gerçek zamanlı polimeraz zincir reaksiyonu (qRT-PCR)
Toplam RNA TRIzol reaktifi kullanılarak izole edildi ve birinci zincir cDNA, Ters Transkripsiyon Sistemi Kiti ile sentezlendi. cDNA daha sonra SYBR-yeşil PCR Master Karışımı kullanılarak qRT-PCR için seyreltildi ve GAPDH dahili kontrol olarak kullanıldı. İfadedeki göreli katlanma değişiklikleri 2−ΔΔCt yöntemiyle hesaplandı. Analiz için kullanılan primerler şöyleydi: TUBA1C-ileri: 5′-GACCTCGTTGACCGAAT-3′ ve geri: 5′-CGAGGTGAACCCAGAACCAG-3′; NCF4 önde: 5′-CTAAGTTTCAAAGCTGGAGATGTG-3′ ve geri: 5′-GAATTCCTGAAAGGGCTCCTG-3′; PRF1-ileri: 5′-CCCAGTGGACACACAAAGGTT-3′ ve geri: 5′-TCGTTGCGGATGCTACGAG-3′; SLPI-ileri: 5′-CCCTTCCTGGTGCTGCTT-3′ ve geri: 5′-CCTCCTTGTTGGTTTTGG-3′; HSP90B1-ileri: 5′-CCGAAGAAGAACCTGAAGAG-3′ ve geri: 5′-CATCTGTTCCCACATCCATT-3′; PLAU-ileri: 5′-GGGGAGATGAAGTTTGAGGTGG-3′ ve geri: 5′-GCAATGTCGTTGTGGTGAGC-3′; GAPDH-ileri: 5′-CAGGGCTCTTTTAACTCTGG-3′ ve geri: 5′-GGGTGGAATCATATTGGAACA-3′.
Western BLOT testi
Toplam protein izole edildi, yükleme tamponunda seyreltildi ve %10 SDS-PAGE ile ayrıldı, ardından PVDF membranlarına aktarıldı. Zarlar bloklandı ve anti-TUBA1C (1:1000, ab222849), anti-HSP90B1 (1:1000, ab238126), anti-NCF4 (1:1000, 14648-1-AP), anti-PRF1 (1:1000, ab256453), anti-SLPI (1:1000, ab46763), anti-PLAU (1:1000, 17968-1-AP) ve anti-GAPDH (1:5000, 10494-1-AP) dahil olmak üzere spesifik birincil antikorlarla kontrol edildi. Adar turpu peroksidaz (HRP) ile konjuge edilmiş ikincil antikorlar (1:2000, ab6721) uygulandı ve bantlar geliştirilmiş kemimilüminesans (ECL) alt yüzeyi kullanılarak görselleştirildi.
İstatistiksel analiz
İstatistiksel analiz, GraphPad Prism Software kullanılarak yapıldı ve veriler ortalama ± SD olarak sunuldu. Gruplar arasındaki farklar Student'in t-testi kullanılarak değerlendirildi ve 0.05'in altında olan bir P-değeri istatistiksel olarak anlamlı olarak kabul edildi.
Sonuçlar
DEG'lerin Tanımlanması
Bu çalışmada biyoinformatik analiz için GSE78721 ve GSE12288 olmak üzere iki veri seti kullanıldı. GSE78721 yılında, T2DM hastaları ile normal örnekler arasında toplam 2.266 DEG'ler tespit edildi; bunlar 1.209 yukarı regülasyonlu ve 1.057 aşağı regülasyona edilmiş genden oluşuyordu (Şekil 1A). GSE12288 yılında, ASCVD hastaları ile kontrol grupları arasında 924 DEG doğrulandı; bunların 403'ü aşırı eksprese edilmiş ve 521'i aşağı regulasyonlu olan genler (Şekil 1C). Her iki veri setinde tanımlanan en üst 50 derece, Şekil 1B,D'de gösterilen ısı haritalarında temsil edilmiştir. Bu iki veri setinin kesiştirilmesiyle 32 C-DEG, 20 yukarı regülasyonlu ve 12 aşağı regülasyona edilmiş genden oluşuyor (Şekil 2A,B).
C-DEG'lerin GO ve KEGG zenginleştirilmesi
32 C-DEG'le ilişkili biyolojik fonksiyonları ve ana yolları aydınlatmak için GO ve KEGG analizleri yapıldı. C-DEG'ler arasında biyolojik süreç (BP), hücresel bileşen (CC) ve moleküler fonksiyon (MF) ile ilgili en önemli on terim Şekil 3A'da sunulmaktadır. BP işlevleri ağırlıklı olarak plazminojen aktivasyonunun regulasyonu, fibrinolizin, kardiyositlerin farklılaşmasının pozitif regülasyonu, protein bağlanmasının negatif regülasyonu ve kardiyoblast farklılaşmasını içerir. CC fonksiyonları, serin tipi endopeptidaz kompleksi, hücre-matriks yapışmasında yer alan protein kompleksleri, yoğunlaşmış kromozom, spesifik granül membran ve PML gövdesine aittir. MF, sitoskeletonun yapısal bileşenlerini, süperoksit üreten NADPH oksidaz aktivatör aktivitesini, intramoleküler transferaz aktivitesini (fosfotransferazlar), serin tipi ekzopeptidaz aktivitesini ve IgG bağlanmasını kapsar (Şekil 3A). KEGG analizi açısından C-DEG'ler öncelikle viral miyokardit, aritmogenik sağ ventriküler kardiyomiyopati, komplement ve koagulasyon kaskadları, prostat kanseri, hipertrofik kardiyomiyopati, dilatlaşmış kardiyomiyopati, apoptoz, fagozom ve endoplazmik retikulumda protein işleme gibi kritik yollarda yer aldı (Şekil 3B).
PPI ağlarının inşası ve hub gen taraması
32 C-DEG'den üçü STRING veritabanındaki diğer C-DEG'lerle bilinen bir etkileşim göstermediği için PPI ağ yapısından dışlandı. STRING platformu, kalan 29 C-DEG'nin PPI analizi için kullanıldı ve 29 düğüm ve 39 kenardan oluşan bir ağ ortaya çıktı; bu ağ Cytoscape kullanılarak görselleştirildi (Şekil 4A). Daha sonra, bağlantı derecelerine göre sekiz merkez C-DEG'i (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C ve CS) tanımlanmıştır (Şekil 4B).
Bağışıklık hücresi infiltrasyonundaki farklar ve bunların merkez C-DEG'lerle korelasyonu
Bu analiz, bağışıklık mikroçevresindeki değişiklikleri T2DM bağlamında ve bunların hub genleriyle ilişkisini ön hazırlıkta incelemek için yalnızca T2DM veri setine (GSE78721) odaklandı. Keman grafikleri, T2DM veri seti ile 22 bağışıklık hücre tipinin infiltrasyon seviyeleri arasındaki ilişkiyi görselleştirmek için kullanılmıştır (Şekil 5A; detaylar Ek Tablo 3'te). Bağışıklık hücresi infiltrasyon analizi, T2DM grubunda aktif dendritik hücrelerin kontrol grubuna göre daha yüksek oranda olduğunu gösterdi (P = 0,049), dinlenme halindeki dendritik hücrelerin oranı ise T2DM grubunda anlamlı derecede düşüktü (P = 0,023). Ayrıca, sekiz merkez C-DEG'nin ifade seviyeleri ile 22 farklı bağışıklık hücre tipinin sızma seviyeleri arasındaki ilişki bir ısı haritası kullanılarak görselleştirildi (Şekil 5B). Özellikle, TOP3A ekspresyonu, düzenleyici T hücrelerinin (Tregs) infiltrasyon seviyesiyle güçlü pozitif bir korelasyon gösterdi (P < 0.001), SLPI ekspresyonu ise gamma delta T hücre infiltrasyonu ile güçlü pozitif korelasyonluydu (P < 0.001). Buna karşılık, NCF4 ekspresyonu aktive NK hücrelerinin infiltrasyon seviyesiyle (P < 0.001) güçlü negatif korelasyon gösterdi, PRF1 ekspresyonu M2 makrofajlarının infiltrasyon seviyesiyle (P < 0.001) güçlü negatif korelasyondu, PLAU ekspresyonu ise naif B hücrelerinin infiltrasyon seviyesiyle (P < 0.001) güçlü şekilde negatif ilişkiliydi.
Merkez C-DEG'ler için aday ilaç hedefi ağı
Belirlenen sekiz merkez C-DEG'den CS ve TOP3A, DGIdb veritabanında bilinen ilaç hedefleri olarak listelenmedi ve bu nedenle sonraki aday ilaç hedefi ağı analizinden dışlandı. T2DM ve ASCVD'de potansiyel terapötik rolleri olan ilaçları belirlemek için, kalan altı merkez C-DEG'i DGIdb veritabanına gönderildi (detaylar Ek Tablo 4'te). Daha sonra, Cytoscape merkez C-DEG'ler ile aday hedefli ilaçlar arasındaki ilişkileri gösteren bir aday ilaç hedefi ağı oluşturmak için kullanılmıştır (Şekil 6). Bu ağ, altı merkez C-DEG, 136 moleküler ilaç ve 137 kenardan oluşuyordu. Özellikle, TUBA1C, NCF4, PRF1, SLPI, HSP90B1 ve PLAU için 82, 5, 3, 3, 4, 1 ve 42 aday hedef ilaç tespit edildi; bunların çoğu antineoplastik ajanlar, anti-enflamatuar ajanlar ve antitrombotik ajanlar olarak sınıflandırıldı.
Hub C-DEG'lerinin ifadesinin doğrulanması
DGIdb veritabanında CS ve TOP3A'nın aday ilaç hedefleri olarak olmaması ve biyolojik işlevlerinin T2DM ve ASCVD araştırmaları bağlamında terapötik stratejilerle daha az doğrudan ilişkili olması nedeniyle, çalışma deneysel doğrulama için kalan altı merkez C-DEG'ye (HSP90B1, PLAU, SLPI, NCF4, PRF1 ve TUBA1C) odaklandı. Bu merkez C-DEG'lerin rollerini daha fazla incelemek için, farklı gruplar arasında çekirdek genlerin ekspresyon seviyelerini değerlendirmek amacıyla qRT-PCR ve western blot testleri yapıldı (Şekil 7 ve Şekil 8). TUBA1C, NCF4, SLPI, HSP90B1 ve PLAU'nun ifade seviyeleri, T2DM ve ASCVD hastalarında sağlıklı kontrol gruplarına kıyasla anlamlı şekilde yükselmiş, PRF1 ekspresyonu ise aşağı regülasyonluydu. Bu bulgular, bu çekirdek genlerin T2DM ve ASCVD hastalarının ilerlemesinde önemli bir rol oynayabileceğini göstermektedir.
VERİ ERIŞILEBILIRLIĞI:Bu çalışmada biyoinformatik analiz için kullanılan GSE78721 ve GSE12288 gen ifade veri setleri, kamuya açık NCBI GEO veritabanından tembelendir. Bu çalışmada oluşturulan deneysel doğrulama kısmından ham veriler, Ek Dosya 1'de sunulmaktadır.
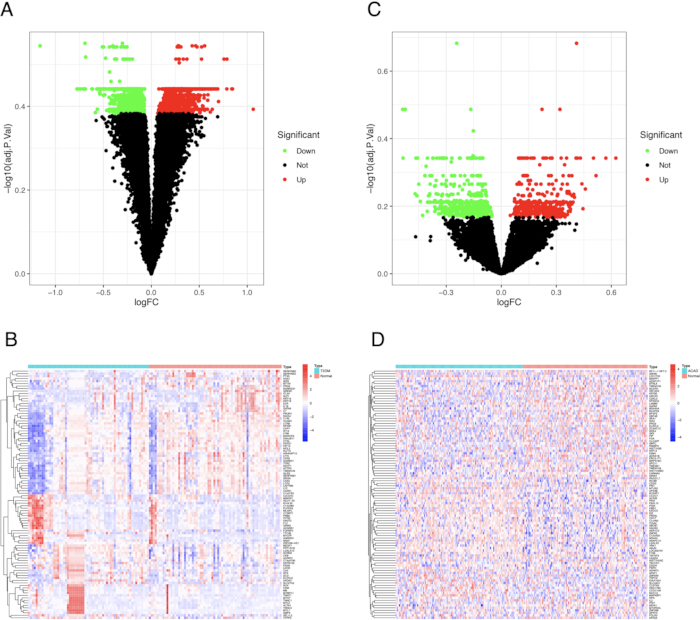
Şekil 1: GSE78721 ve GSE12288 veri setlerindeki DEG'lerin tanımlanması. (A,C) Sırasıyla GSE78721 ve GSE12288 yıllardaki DEG'lerin volkan haritaları. |logFC|≥ 0.5 ve P < 0.05 tarama eşiği olarak belirlendi; Yukarı regülasyona uğrayan genler kırmızı, aşağı regülasyonlu genler ise yeşil olarak işaretlendi. (B,D) Sırasıyla GSE78721 ve GSE12288'in ilk 50 derecesinin ısı haritaları. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
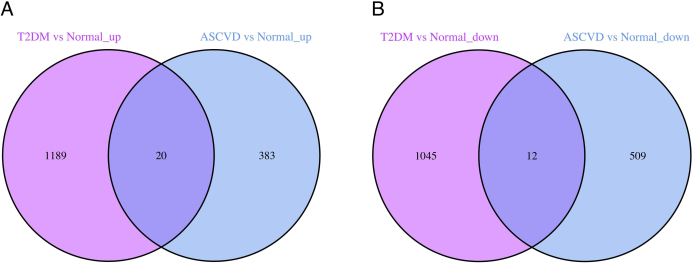
Şekil 2: İki veri setinden C-DEG'lerin Venn diyagramı. (A) GSE78721 ve GSE12288 veri setlerinde T2DM ve ASCVD'den yukarı regülasyona edilmiş C-DEG'lerin Venn diyagramı. (B) GSE78721 ve GSE12288 veri setlerinde T2DM ve ASCVD'den aşağı regülasyona edilmiş C-DEG'lerin Venn diyagramı. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
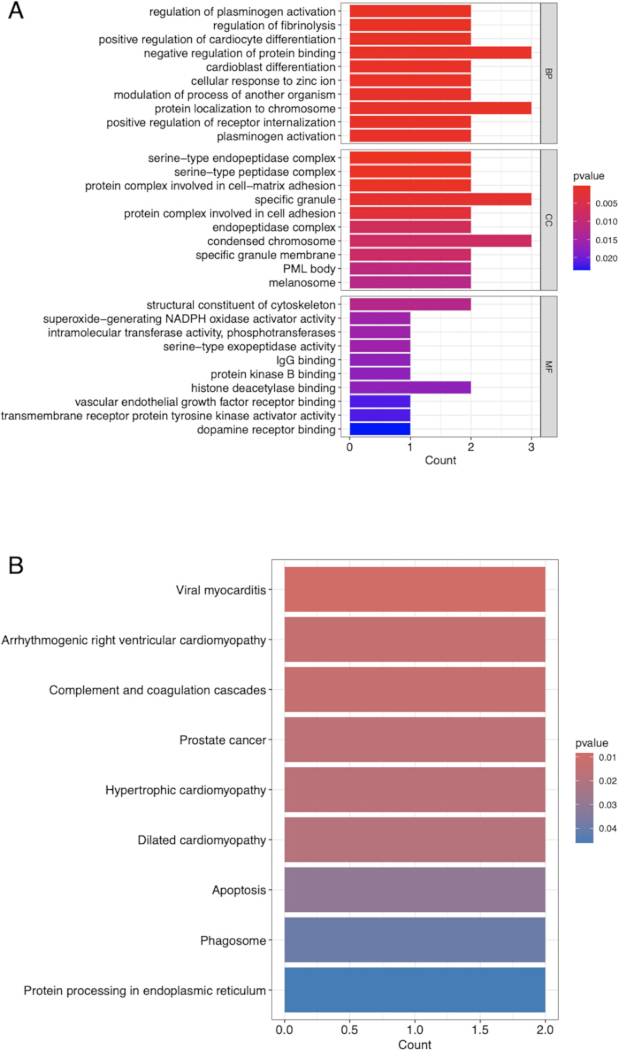
Şekil 3: C-DEG'lerin fonksiyonel ve yol zenginleştirme analizi. GO (A) ve KEGG (B) zenginleştirme analizlerinin bar grafikleri. Dikey koordinatlar farklı GO öğelerinin veya KEGG yollarının tanımını, yatay koordinatlar ise zenginleştirilmiş C-DEG'lerin sayısını gösterir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
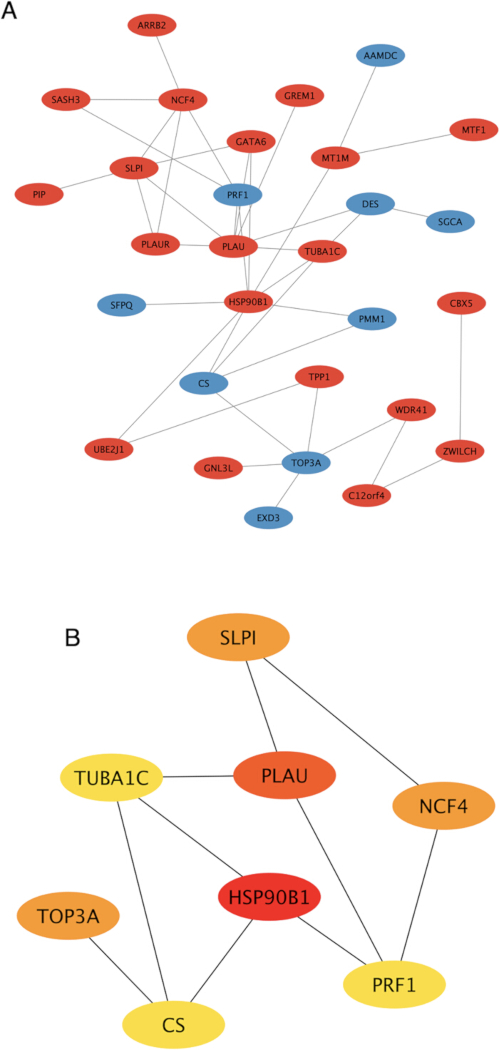
Şekil 4: C-DEG'lerin PPI ağı ve hub gen taraması. (A) C-DEG'lerin PPI ağı. Kırmızı ve mavi, sırasıyla yukarı regülasyon ve aşağı regülasyonlu C-DEG'leri temsil eder. (B) C-DEG'ler arasında sekiz hub geni tanımlandı. Düğümler bir C-DEG'yi temsil ederken, kenarlar C-DEG'ler arasındaki etkileşimi temsil eder. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
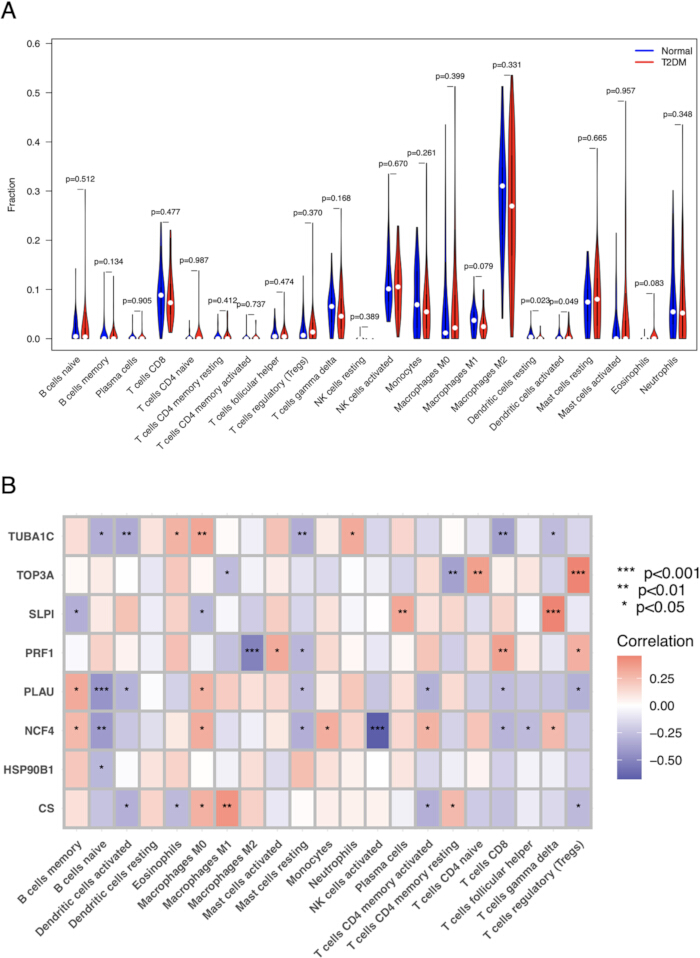
Şekil 5: İmpün hücre infiltrasyon analizi. (A) T2DM grubu ile kontrol grubu arasında 22 bağışıklık hücre tipinin infiltrasyonundaki farklar. Yatay eksen: bağışıklık hücresi alt tipleri; Dikey eksen: bağışıklık hücrelerinin göreli infiltrasyon seviyesi. (B) 8 merkez C-DEG'nin ekspresyonunun ve 22 bağışıklık hücre tipinin infiltrasyon seviyelerinin korelasyon ısı haritası. Kırmızı kareler: pozitif korelasyon; Mavi kareler: negatif korelasyon. Daha koyu renkler daha güçlü korelasyonları gösterir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
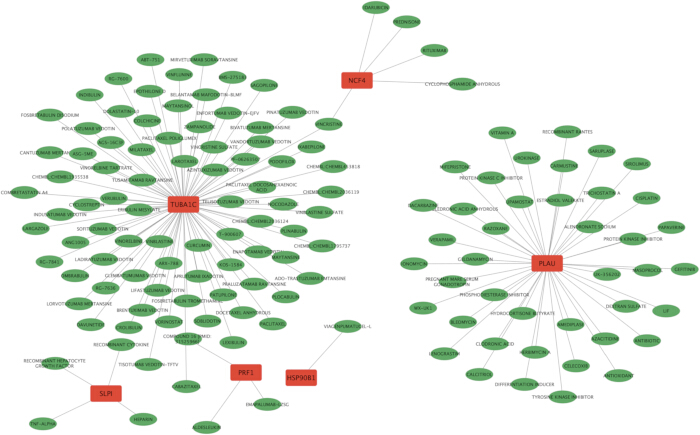
Şekil 6: Altı merkez C-DEG'si için aday ilaç hedefi ağı. Kırmızı düğümler merkez C-DEG'leri, yeşil düğümler aday hedeflenmiş ilaçları, aralarındaki kenarlar ise etkileşim çiftlerini temsil eder. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
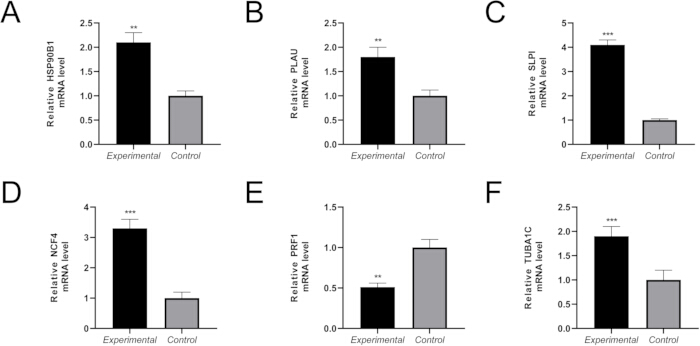
Şekil 7: T2DM ve ASCVD hastalarında çekirdek gen ekspresyonunun qRT-PCR ile doğrulanması. HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) ve TUBA1C (F) mRNA ekspresyon seviyeleri qRT-PCR ile tespit edildi. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
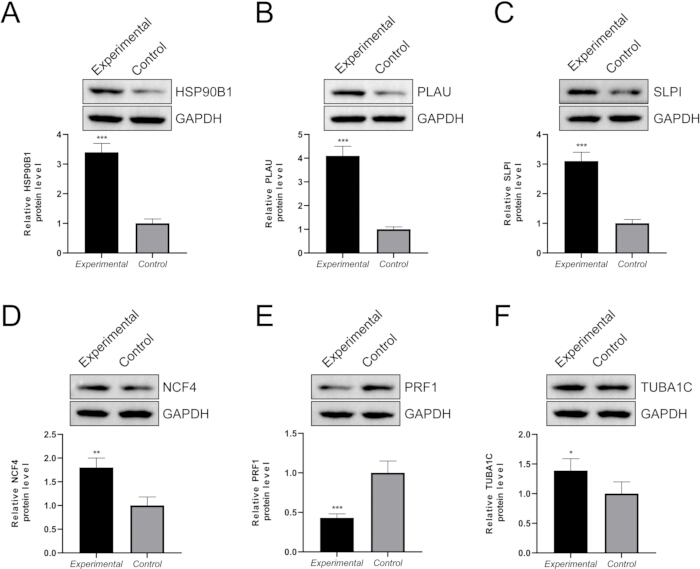
Şekil 8: Western Blot ile T2DM ve ASCVD hastalarında çekirdek gen ekspresyonunun doğrulanması. HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) ve TUBA1C (F) protein ekspresyon seviyeleri Western blot testleriyle tespit edildi. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Ek Tablo 1. Bu çalışmada T2DM transkriptomik analizi için kullanılan GSE78721 veri seti için gen ifade matrisi. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 2. Bu çalışmada ASCVD transkriptomik analizi için kullanılan GSE12288 veri seti için gen ifade matrisi. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 3: GSE78721 veri setinde bağışıklık hücresi infiltrasyon analizi. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 4: Hub ortak farklı şekilde eksprese edilen genler için aday ilaç hedefi etkileşimleri. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 1: Bu çalışmada oluşturulan deneysel doğrulama kısmından ham veriler. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
T2DM ve ASCVD karmaşık hastalıklardır ve ortaya çıkan kanıtlar ikisi arasında önemli bir ilişki olduğunu göstermektedir. İnsülin direnci, ASCVD'nin gelişimine katkıda bulunan ve prognozunuetkileyebilecek T2DM dahil olmak üzere çeşitli kardiyovasküler metabolik anormalliklerin temel öncüsü olarak hizmet eder. Ayrıca, DM ateroskleroz20'nin ilerlemesinde itici bir faktördür. T2DM olan bireyler CAD21 riskinin artmasıyla karşı karşıya, ancak komorbiditenin temel mekanizmaları hakkında sorular hâlâ devam etmektedir. Bu çalışma, bu iki hastalığı birbirine bağlayan ilişki ve mekanizmaları incelemeyi, ayrıca biyoinformatik analiz ve deneysel doğrulama yoluyla potansiyel biyobelirteçleri belirlemeyi amaçlamaktadır.
Bu çalışmada, T2DM ile ASCVD arasında toplam 32 C-DEG, 20 yukarı regülasyona ve 12 aşağı regülasyona sahip genlerden oluşmaktadır. GO ve KEGG zenginleştirme analizleri, bu C-DEG'lerin ağırlıklı olarak hem CAD hem de T2DM22,23 ile yakından ilişkili kritik metabolik yollarda zenginleştiğini ortaya koydu. Sekiz merkez C-DEG'i (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C ve CS) iki koşulda kontrol edildi. Özellikle, hub C-DEG'ler (TOP3A, SLPI, NCF4, PRF1 ve PLAU) bağışıklık hücrelerinin infiltrasyon seviyeleriyle anlamlı şekilde ilişkilendirilmiştir. HSP90B1, kanserilerlemesi 24'te rol oynamış ve ayrıca T2DM25 ile ilişkisi olabilir. PLAU'nun, T2DM26 ile ilişkili erken damar yaşlanmasını önlemede rol oynadığı gösterilmiştir ve aterosklerotik plak ilerlemesinde kritik rol oynamıştır; erken uyarı biyobelirteçleri için içgörüler sağlar ve CADilerlemesinin 27 altında yatan mekanizmaları aydınlatmaktadır. SLPI ilerleyici metabolik disfonksiyonla birlikteartar, 28 ve glukoz toleransının bozulmasıyla ilişkili C-DEG ve T2DM29 olarak tanımlanmıştır. NCF4, CAD30 ile bağlantılar kurmuş ve NADPH oksidaz aktivitesi ile inflammazomaktivasyonu 31'in düzenlenmesine katkıda bulunmaktadır. PRF1'in bağışıklık izleme vedüzenleme 32'deki kilit rolü nedeniyle, miyokard enfarktüsü ile stabil CAD33 arasında ayrım yaparak tanısal potansiyele sahiptir. Ayrıca, PRF1, obeziteyle ilgili insülin direncinde kritik bir bağışıklık düzenleyici oyuncuolarak görev yapar 34. TUBA1C ayrıca kanserlerle ilişkilendirilmiş ve tümör mikroçevresindeki bağışıklıkinfiltrasyonuyla ilişkilidir 35. Koroner kalp hastalığı36 için bir hassalık geni olarak tanımlanmıştır. Ancak, ASCVD ile T2DM arasındaki ilişki hâlâ yeterince araştırılmamıştır.
KEGG analizi, bu aday genlerin "Tamamlayıcı ve Koagülasyon Kaskadları" ve "Endoplazmik Retikülümde Protein İşleme" gibi yollarda yer aldığını ortaya koydu. Bu yollardaki anahtar genlerin deneysel doğrulaması, özellikle PLAU (fibrinoliz ve pıhtılaşmada rol alan serin proteaz) ve HSP90B1 (endoplazmik retikulum şaperon), T2DM modelimizde bu genlerin düzensizliğini doğruladı. Bu bulgular, araştırmamızı belirli bir moleküler çerçeve içinde konumlandırmakta olup, endoplazmik retikülüm stres yanıtı ve trombolitik yollardaki dengesizliklerin diyabetik patolojinin ayrılmaz bir parçası olabileceğini, yaygın olarak bilinen iltihap süreçlerin ötesine geçebileceğini öne sürmektedir.
Kapsamlı araştırmalar, diyabet hastalarında işlevsiz bağışıklık yanıtlarınıbelgelemiştir 37. Anormal bağışıklık hücresi aktivasyonu, T2DM 38,39'un ilerlemesinde kritik bir rol oynar. İmmün infiltrasyon analizi, T2DM'de dendritik hücre bölmesinde önemli bir değişiklik ortaya koydu; bu değişiklik, aktive dendritik hücrelerin oranının artması ve dinlenme halindeki dendritik hücrelerin oranının azalmasıyla karakterize edildi (Şekil 5A). Bu, T2DM'de antijen sunumunun ve bağışıklık aktivasyonunun arttığını, hedef dokularda kronik inflamatuar hasara katkıda bulunabileceğini göstermektedir. Ayrıca, spesifik merkez genleri arasında gözlemlenen güçlü korelasyonlar (örneğin, aktifasyona sahip NCF4, M2 makrofajları ile PRF1) (Şekil 5B), metabolik dokulardaki gen ekspresyonu ile yerel bağışıklık mikroçevre bileşimi arasında mekanistik bağlantılar olduğunu ve böylece immünomodülatör müdahaleler için yeni hedefler belirlediğini göstermektedir.
Ayrıca, T2DM ve ASCVD için potansiyel terapötik hedefler, altta yatan mekanizmalar ve ilaçları tahmin etmek amacıyla bir ilaç-hedef ağ analizi yapıldı. Bu aday ilaç hedefi ağı, altı merkez C-DEG, 136 moleküler ilaç ve 137 kenarı kapsıyordu. Analiz, sırasıyla TUBA1C, NCF4, PRF1, SLPI, HSP90B1 ve PLAU için 82, 5, 3, 4, 1 ve 42 aday hedef ilaç ortaya koydu. Bu ilaçların çoğu antineoplastik ajanlar, anti-inflamatuar ajanlar ve antitrombotik ajanlar olarak sınıflandırılır. Özellikle, Rituximab, Prednizon, Antioksidantlar, Verapamil, Antibiyotikler, Kolşisin ve Heparin gibi bazı ilaçlar, T2DM 15,40,41,42,43,44,45,46 ve CAD 15,47,48,49,50 gibi terapötik işlevler göstermiştir. 51,52,53,54,55, bu da T2DM ve CAD hastalarında potansiyel terapötik etkilerini göstermektedir. Ayrıca, Alendronat sodyum, Kalsitriol, Celecoxib, Masoprokol, Mifepriston ve Kurkumin gibi çeşitli ilaçların özellikle T2DM 56,57,58,59,60,61,62,63 içinde terapötik işlevler gösterdiği gösterilmiştir, bu da ASCVD için faydalı olabilir. Bu merkez C-DEG'lerin T2DM ve ASCVD'deki ifadesinin doğrulanması da gerçekleştirildi.
Bu çalışmanın birkaç sınırlaması vardır. Birincisi, doğrulama deneyindeki klinik örneklem boyutları yetersizdi ve genişletilmesi gerekiyordu. İkinci olarak, T2DM ile ASCVD arasındaki bağlantıya dair değerli bilgiler sağlamak için daha fazla deneysel araştırma gereklidir. Gelecekteki çalışmalar, sonuçların daha büyük klinik gruplarla doğrulanmasını ve bu iki hastalığı birbirine bağlayan moleküler mekanizmaları ve patolojik yolları aydınlatmak için daha kapsamlı deneysel çalışmalar yürütmeyi içerecektir. Deneysel doğrulama bölümünde, T2DM ve ASCVD hastalarından alınan örnekler sağlıklı kontrol gruplarıyla karşılaştırmak üzere tek bir "deneysel grup" olarak toplandı. Bu tasarım, komorbid durumda tespit edilen çekirdek C-DEG'lerde genel ifade değişikliklerinin doğrulanmasını kolaylaştırsa da, bu ifade değişikliklerinin T2DM, ASCVD veya her ikisi tarafından mı ortak olduğu konusunda ayrım yapmaz. Sonraki çalışmalar, bireysel hastalıklarda bu genlerin spesifik rollerini komorbid duruma göre daha doğru ayırt etmek için T2DM hastaları, ASCVD hastaları ve ASCVD ile birlikte T2DM hastaları gruplarını karşılaştırmalıdır. Ayrıca, bağışıklık hücresi sızma analizi yalnızca T2DM veri seti (GSE78721) üzerinde yapıldı ve ASCVD veri seti için paralel yapılmadı (GSE12288). Bu nedenle, merkez C-DEG'ler ile bağışıklık hücresi infiltrasyon seviyeleri arasındaki bildirilen korelasyonlar (örneğin, Tregs ile TOP3A, gama delta T hücreleri ile SLPI) yalnızca T2DM'nin patolojik bağlamında potansiyel immünomodülatör rollerini yansıtır. Bir diğer sınırlama ise, tahmin edilen ilaç-hedef etkileşimleri için fonksiyonel doğrulamanın olmamasıdır. Gelecekteki araştırmalar, bağlanma afinitesini değerlendirmek için moleküler kenetlenme simülasyonlarını ve bu aday ilaçların terapötik etkinliğini değerlendirmek için hayvan modelleriyle in vivo deneyleri içermelidir.
Sonuç olarak, bu entegre biyoinformatik analiz ve ön deneysel doğrulama ile desteklenerek, T2DM ile ASCVD arasında birkaç ortak merkez gen ve yolları belirlemiş ve bu genleri hedefleyen potansiyel ilaç adayları önermiştir. Bu bulgular, T2DM ile ASCVD arasındaki karmaşık etkileşimin daha fazla mekanik ve terapötik keşfi için yeni hipotezler ve aday hedefler sunmaktadır.
Açıklamalar
Yazarlar rekabet eden çıkarlar belirtmemektedir.
Teşekkürler
Yazarlar, Ningxia Doğa Bilimleri Vakfı Programı (Hibe No. 2023AAC03498) ve Yinchuan Bilim ve Teknoloji İnovasyon Projesi (Hibe No. 2024SF005) tarafından sağlanan mali desteği minnettarlıkla takdir etmektedir. Yazarlar ayrıca bu çalışmayı mümkün kılan tüm katılımcılara ve araştırmacılara teşekkür etmektedir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
Kaynaklar
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.