Bu protokol, yetişkin ve yenidoğan fare iskelet kaslarından birincil miyoblastların doku ayrışması, ardışık filtrasyon, ön kaplama ve tanımlanmış kültür koşulları yoluyla izole edilmesi ve zenginleştirilmesi için standartlaştırılmış bir yöntem sunar; böylece uydu hücresinden türetilen miyoblast kültürlerinin sonraki deneysel uygulamalar için oluşturulması ve bakımı mümkün olur.
Yöntem makalesi
In vitro miyogenez çalışmaları için iskelet kası uydu hücrelerinin izolasyonu
* These authors contributed equally
Bu makalede
Özet
Özet
İskelet kası yenilenmesi ve büyümesi, kas dokusunun yerleşik kök hücreleri olan uydu hücrelerine bağlıdır. Şu anda bu hücreler, doğal miyojenik süreçleri en doğru şekilde temsil eden in vitro model olarak hizmet vermektedir. Buna rağmen, uydu hücrelerinin izolasyonu teknik olarak zordur; çünkü iskelet kasında sadece az sayıda bulunmakta ve izole hücre popülasyonlarının tipik heterojen yapısı vardır. Bu çalışmada, hem yetişkin hem de yenidoğan farelerin iskelet kaslarından primer miyoblastların izole edilmesi ve zenginleştirilmesi için standartlaştırılmış bir yöntem tanımlıyoruz. Prosedür, kas diseksiyonu, enzimatik ayrışma, ardışık filtrasyon, miyojenik olmayan hücreleri sınırlamak için ön kaplama adımlarını ve uydu hücresinden köken miyoblast kültürlerinin oluşturulması için tanımlanmış kültür koşullarını özetlemektedir. Protokol, başarılı bir kültür oluşturmak için zamanlama, yönetim ve kritik adımlar hakkında pratik rehberlik sağlar. Bu protokolle üretilen birincil miyoblastlar, miyogenez, fonksiyonel analiz, genetik manipülasyon, canlı hücre görüntüleme veya ilaç testi gibi çeşitli sonraki uygulamalar için kullanılabilir. Hücreler güvenilir şekilde birleşir ve olgunlaşır; bu da onları myoblast füzyon, kas gelişimi, iskelet kası fonksiyonunu yeniden kazandıran rejeneratif mekanizmalar ve metabolizma çalışmaları için oldukça uygundur.
Giriş
İskelet kasının bütünlüğüne yapılan herhangi bir hakaretten sonra yenilenme kapasitesi, temelde miyofiber boyunca uydu konumlarından dolayı adlandırılan uydu hücreleri (SC) olarak bilinen özel bir miyojenik öncü hücre popülasyonuna bağlıdır. Bunlar kas lifi laminasının altında, çok çekirdeklikas lifleri 1,2,3'e bağlı olarak konumlanır. SC'ler, insan, fare, maymun ve domuz dahil olmak üzere birden fazla türde korunan eşleşmiş kutu protein Pax7'nin ekspresyonuyla karakterize edilir. Hem hareketsiz hem de aktif halde SC'ler için tespit edilebilir ilk belirteç olarak tanımlanan Pax7, SC4'ün gelişimi ve hayatta kalması için hayati öneme sahiptir. Normal koşullarda, SC'ler düşük metabolik aktivite ve transkripsiyonel olarak inaktif olmakla karakterize edilen (hücre döngüsünün G0 fazı) sakin bir durumdatutulur 5,6. Kas yaralanması veya mekanik stres olduğunda, aktive olurlar, hücre çevrimine devam ederler, sayılarını artırır ve yeni miyoliflere katkıda bulunmak veya hasar görmüş olanları onarmak içinfarklılaşırlar 7,8,9. Bu süreçte, SC'lerin bir alt kümesi kök hücre havuzunun uzun vadeli bütünlüğünü korumak için kendini yenilemekte ve hareketsiz (Pax7⁺) bir duruma dönmelidir. Kendini yenileme, ya asimetrik bölünme yoluyla gerçekleşir; burada bir kız hücre kök benzeri özellikleri korurken diğeri ise bağlı miyojenik bir öncül olur; ya da her iki kız hücrenin ya kök benzeri bir kimlik korurken ya da fizyolojik ve niş bağlamda farklılaştığı simetrikbölünme yoluyla gerçekleşir 10,11,12.
SC'ler, kas rejenerasyonunda hayati bir rol oynar ve iskelet kas biyolojisi, rejeneratif tıp ve kas distrofisi araştırmalarında önemli bir odak noktası haline gelir. Bu hücrelerin nasıl davrandığını ve işlevini anlamak, kas onarımının temel süreçlerini aydınlatmakla kalmaz, aynı zamanda kas zayıflamasını tedavi etmek ve yenilenmeyi artırmak için tedavilerin geliştirilmesinin yolunu açar.
SC'lerin kas dokusundan izolasyonu, in vitro çalışmalarda kritik bir adımdır ve moleküler özelliklerinin, proliferasyon potansiyelinin, farklılaşma yollarının ve çeşitli uyaranlara yanıtlarının incelenmesini mümkün kılar. Ancak, kasın karmaşık yapısı, diğer hücre tiplerine kıyasla uydu hücrelerinin nispeten düşük bolluğu ve izolasyon sırasında canlılık ve kök varlıklarının korunması gerekliliği nedeniyle bu süreçte birçok teknik zorluk vardır.
Şu anda SC'lerin izolasyonu için üç ana teknik kullanılmaktadır: ön kaplama yöntemi, floresansla aktifleşen hücre sıralaması (FACS) ve manyetik aktifleşen hücre ayırma (MACS). Her yöntem, saflık, verim, hücre yaşama ve SC koruma açısından kendine özgü avantajlar ve sınırlamalar sunar.
Preplate yöntemi, kas kaynaklı hücrelerin farklı yapışkan özelliklerini kullanır ve SC'ler en az yapışkanlar arasındadır. İskelet kası enzimatik olarak sindirildikten sonra, ortaya çıkan heterojen hücre süspansiyonu, genellikle kolajen tip I ile kaplanmış kültür plakalarına yerleştirilir. Protokole bağlı olarak 1-24 saat (37°C) kuluçkadan sonra, yapışmayan hücreler toplanır ve daha fazlakültür için Matrigel kaplı bir plakaya aktarılır 13,14,15,16. Ortaya çıkan popülasyon genellikle hem SC'ler hem de fibroblastların yanı sıra az sayıda adiposit ve endotel hücresiniiçerir (17,18). Ön kaplama işleminin her 24-48 saatte bir tekrarı, yetişkin farelerden izole edilen SC'ler için bir haftaya kadar, yenidoğanlar için ise 2 haftaya kadar tekrarlanması, hücre popülasyonunun saflığını artırabilir. Bu yöntem ekonomik ve teknik olarak basit olsa da, emek yoğundur ve genellikle değişken bileşime sahip kültürler verir. Ön kaplama yöntemi, FACS veya MACS olmayan laboratuvarlar için uygundur; uydu hücrelerini zenginleştirmenin basit bir yolunu sunarken yaşamlılığı ve gövde benzeri özelliklerini korur. Bu nedenle, hücre popülasyonunun genel saflığını artırmak için bu yaklaşımın ek arıtma yöntemleriyle birleştirilmesi genellikle önerilir. Mevcut protokolde, kolajen kaplı plakalar kullanarak ve modele göre zamanlamayı ayarlayarak ön kaplama adımını optimize ettik. Bu farklı yapışma, fibroblast çıkarılmasını hızlandırır, ön kaplama süresini kısalır, büyüme faktörleri kullanır ve izolasyon sırasında hem işlem süresini hem de hücresel stresi azaltır.
FACS, belirli yüzey belirteçlerinin (α7-integrin, CD34, CD29, β1-integrin, CXCR4) ifadesine dayalı uydu hücrelerini izole etmek için yaygın kullanılan bir yöntemdir ve yüksek saflık ve özsellik19,20 sağlar. Ancak, teknik karmaşıklık, yüksek antikor maliyeti ve özel ekipman ihtiyacı nedeniyle genellikle zordur. Ayrıca, ayırma sırasında uygulanan mekanik ve biyokimyasal stres hücrenin canlılığını zayıflatabilir. Tek hücreli süspansiyon üretimi gereksinimi önemli hücre kaybına yol açabilirken, belirli floresan belirteçlere bağımlılık uydu hücre heterojenliğinin eksik temsiline yol açabilir. Ayrıca, hücreleri ayırmak için kullanılan enzimatik sindirim, kritik yüzey antijenlerini bozma potansiyeline sahiptir; bu da doğru tanımlama ve izolasyonu etkiler ve myoblastfonksiyonunu da bozabilir 21,22. FACS, özellikle hassas fenotipik çözünürlük gerektirdiğinde, son derece saf popülasyonları kısa sürede izole etmek için uygundur. Ancak, bu yöntem, ayırma sırasında uygulanan mekanik ve biyokimyasal stresler nedeniyle veya özel ekipmana sahip olmayan laboratuvarlar için sağlam ve canlı hücrelerin korunması kritik olduğunda daha az uygundur.
MACS ise, uydu hücrelerini izole etmek için kullanılan bir tekniktir; bu teknik, fibroblastların ve genel bağışıklık hücrelerinin belirli yüzey belirteçlerine karşı antikorlara konjuge edilmiş manyetik boncukları yüzeylerine bağlayır ve ardından manyetik alan kullanarak istenmeyen hücre popülasyonlarından ayırır. Durağan fazdan negatif seçilimin elüasyonu, ilgi çeken uydu hücre popülasyonudur. MACS, uydu hücrelerinin nispeten yüksek saflık ve ölçeklenebilirlikle verimli zenginleştirilmesini sağlarken, FACS'e kıyasla daha az özel ekipman ve teknik uzmanlık gerektirir. Ayrıca, hafif manyetik ayırma süreci hücre bütünlüğünü koruyarak, hücre kültürü, gen ifade analizi ve nakil çalışmaları gibi sonraki uygulamalar için uygun hale getirir. Ancak, MACS, birden fazla belirteç gerektiğinde daha düşük saflık, olası spesifik olmayan bağlanma veya boncuk taşınması ve belirteçifadesi 23,24,25 hakkında nicel verilerin eksikliği nedeniyle sınırlıdır.
İskelet kas hücresi izolasyonu için protokollerin mevcut olmasına rağmen, tekrarlanabilir ve bileşim açısından uniform birincil kültürler elde etmek, özellikle gelişimsel ve dokuya özgü değişkenlik nedeniyle hâlâ zordur. Yenidoğan kaslarından SC'lerin izolasyonu, yetişkin kaslara göre daha az kapsamlı şekilde karakterize edilmiştir; yayımlanmış protokoller nispeten daha azdır ve bunların çoğu teknik koşullara ve deneysel amaçlara bağlı olarak daha fazla optimizasyon gerektirir 26,27,28. Enzim konsantrasyonu, sindirim süresi ve kültür koşulları gibi parametrelerin ayarlanması, özellikle yenidoğan çocuklarda genellikle izole uydu hücrelerinin maksimum verimliliği, canlılığı ve saflığını sağlamak için gereklidir. Bu makalede, yetişkin ve yenidoğan farelerin iskelet kaslarından uydu hücrelerinin izolasyonu için optimize edilmiş bir protokolü gösteriyoruz (doğum sonrası günler 6-14, P6-P14), ön kaplama ve MACS ayırtma, ön kaplama zamanlaması ve ortam bileşimi ayarlamalarıyla birleştirilmektedir. Bu protokol, gelişim aşamalarında tekrarlanabilir bir hücre popülasyonu sunar; izole hücreler yüksek saflık ve canlılık gösterir. İmbaşkasının boyama oranı genellikle Pax7+ hücrelerinin oranının %97'yi aştığını gösterir. Ayrıca, bu miyoblastlar sağlam farklılaşma potansiyeli gösterir ve büyüme ortamının farklılaşma ortamıyla değiştirilmesiyle verimli bir şekilde çok çekirdekli miyotüpler oluşturur. Farklılaşmış miyotüpler, faz kontrast mikroskopisi kullanılarak gözlemlenebilir veya olgun kas liflerini gösteren bir belirteç olan miyozin ağır zinciri (MHC) için immünboyama yoluyla doğrulanabilir.
Protokol
Bu çalışmada C57BL/6J × STOCK Tyrcch Bmp5se+/+ Myo6sv/J genotipine sahip yetişkin erkek fareler (3 aylık) ve C57BL/6J x flox/MK5/flox genotipine sahip erkek ve dişi yeni doğan fareler (doğum sonrası günler 6-14, P6-P14) kullanıldı. Fareler, Nencki Deneysel Biyoloji Enstitüsü'nün (PAS) hayvan tesisinde patojensiz koşullarda tutulup yetiştirildi. Deneyler boyunca farelere geleneksel kemirgen diyeti sağlandı. Hayvan bakımı ve ötenazi, Polonya'da kabul edilen Avrupa Toplulukları Konseyi direktiflerine (15 Ocak 2015 tarihli hayvanların araştırmada kullanımına ilişkin yasa) uygun olarak gerçekleştirildi. Tüm çalışmalarda hayvan dokuları acı vermeden kullanıldığı için, etik komitesinin onayı zorunlu değildi. İşlemler, Nencki Deneysel Biyoloji Enstitüsü Direktörü'nün gözetimi ve yetkisi altında gerçekleştirildi. Aşağıdaki iç onaylar verildi: 410P/2021/IBD ve 487W/2022/IBD. Deneyler için, yetişkin hayvanlarda aşağıdaki arka uzuv kasları analiz edildi: gastrocnemius, soleus, extensor digitorum longus ve tibialis anterior. Yenidoğanda, arka uzuv ve ön uzuv triseps kaslarının tamamı incelendi.
Farelerin arka uzuv kaslarından primer miyoblastların izole edilmesi ve saflaştırılması prosedürünün şematik bir özeti Şekil 1'de gösterilmiştir.
Bu çalışmada kullanılan reaktifler ve ekipmanlar hakkında bilgiler Malzeme Tablosu'nda verilmiştir.
1. Kas diseksiyası
- Kurumda belirlenen IACUC onaylı yönergelere uygun olarak fareyi ötenazi yapın.
- Biyogüvenlik kabininin dışındaki arka uzuv kaslarını disseksiyetin. Arka uzuvlara %70 etanol sprey yapın ve fareyi sırtüstü pozisyona getirin.
NOT: Bu aşama için steril bir teknik gerekmez; sadece yüzey dekontaminasyonu için otoklavlı diseksiyon aletleri ve %70 etanol kullanılır. - Kas koleksiyonu
- Arka uzuvlardan deriyi dikkatlice çıkararak alttaki kasları ortaya çıkarmak için otoklavlı makas kullanın. Steril makas ve penseps kullanarak, sırt derisinde bir kesi açın ve arka uzuv kaslarını tamamen açığa çıkarmak için nazikçe geri soyusun. Temiz hazırlanma için görünür yağ dokusu ve tendonları çıkarın.
- Daha homojen bir izolasyon ve daha az kontaminasyon sağlamak için kasın karnını çevreleyen fasyanı dikkatlice soyun. Dokuları izole etmeye devam edin ve bir arka uzuvdan kasları toplayın. Kasları hemen 1x Fosfat-tamponlu Salin içeren bir kültür plakasına aktarın; içinde %1 Penisilin ve Streptomisin (PBS + P/S) bulunur. Karşı arka uzuv için diseksiyonu tekrarlayın ve kasları PBS + P/S içeren ikinci bir kültür plakasına yerleştirin.
NOT: Yeni doğan fareler için optimal yaş aralığı doğum sonrası 6. gün (P6) ile doğum sonrası gün 14 (P14) arasındadır. P6'nın altında kas izolasyonu daha az hassas olur ve çevre dokulardan kontaminasyona yol açabilir, böylece kültür homojenliğini azaltır. P6'dan itibaren, kas karınlarının izolasyonu - kökenden yerleştirme tendonlarına kadar - daha temiz hale gelir ve böylece eksplantların genel kalitesini artırır. Yeni doğan farelerde ise birkaç hayvanın kasları tek bir plakada toplanabilir. Bu noktadan itibaren, tüm işlemler kirlenmeden kaçınmak için steril koşullarda bir biyogüvenlik dolabında ve aksi belirtilmediyse oda sıcaklığında (RT) yapılmalıdır.
- Plakanın dışına %70 etanol püskürtün, sonra steril bir biyogüvenlik dolabına aktarın. İkinci bir çift otoklavlanmış forseps kullanarak, kasları kültür plakasından PBS + P/S içeren 6 delikli plakanın ilk kuyusuna aktarın, ardından dokunun dezenfekte edilmesi için 2-3 damla betadin (100 mg/mL) ekleyin. 10 saniyeden kısa süre nazikçe sallandıktan sonra, kasları taze PBS + P/S içeren ikinci ve üçüncü kuyulara hızla aktararak betadin iyice durulayın ve kalan tüy, bağ dokusu veya diğer kalıntıları temizleyin.
NOT: Kaslar uzun süre betadine maruz kalmamalıdır, çünkü hücreler için toksik olabilir.
2. Kas sindirimi
- İkinci bir çift otoklavlı forseps kullanarak, yıkanmış kaslar iki 1,5 mL'lik tüpe (her arka uzuv kas grubu için bir tüp) aktarılır. Dokuyu otoklavlı makasla ince ince doğrayarak kas yaklaşık 1-2 mm boyutunda küçük, uniform parçalara indirgenmiş hale getirilir; böylece sonraki enzimatik sindirim sırasında eşit bir maruziyet sağlanır.
- Kolajenaz sindirimi
- Kıyılmış kasları, 0,2 μm gözenek filtresiyle filtrelenmiş Dulbecco'nun Modifiye Kartal Ortamı (DMEM) içinde %0,2 kollagenaz içeren doku dissosiyasyon tüplerine aktarın. Her bir arka uzuv kas grubu için bir dissosiyasyon tüpü kullanın; 3 mL kollagenaz çözeltisi başına 500 mg doku oranını koruyun.
NOT: Kollajenaz, solulduğunda cilt ve göz tahrişine ve solunum solunum hassasiyetine neden olabilen proteolitik bir enzimdir. Tozu kimyasal bir duman davlumbonunda kullanın ve uygun kişisel koruyucu ekipman kullanın.
Bu aşamada kas dokusunun kapsamlı şekilde doğranması, optimal miyoblast verimini sağlamak için kritiktir. Ancak, toplam doku kütlesi 500 mg'ı aşarsa, kollagenaz miktarını orantılı olarak artırın; çünkü aşırı doku, aşağıda açıklanan enzim konsantrasyonunda enzimatik sindirim verimini zayıflatabilir. - Örnekleri 37 °C'de 30 dakika kuluçka altına alın ve enzimatik sindirim başlatın.
- Kıyılmış kasları, 0,2 μm gözenek filtresiyle filtrelenmiş Dulbecco'nun Modifiye Kartal Ortamı (DMEM) içinde %0,2 kollagenaz içeren doku dissosiyasyon tüplerine aktarın. Her bir arka uzuv kas grubu için bir dissosiyasyon tüpü kullanın; 3 mL kollagenaz çözeltisi başına 500 mg doku oranını koruyun.
- Mekanik doku dissosiyaatörü kullanılarak doku dissosiyatörü ile m_muscle_01 programı (dissosiyatörde kontrollü mekanik çaltasyondan oluşan özel, önceden tanımlanmış ve optimize edilmiş bir program anlamına gelir) ve enzimatik sindirimi kolaylaştırmak için hücre canlılığını korumak için tasarlanmıştır. Doku mekanik bozulmasını artırmak için programı iki kez uygulayın.
- Eğer doku dissosiyatör yoksa, kıyılmış kasları 20 G'lik bir şırınga iğnesinden birkaç kez geçirerek büyük doku parçaları olmayan homojen bir süspansiyon elde edilene kadar.
Alternatif olarak, kıyma kası %0,2 kollagenaz içeren 15 mL'lik konik bir tüpe aktarabilirsiniz.
- Eğer doku dissosiyatör yoksa, kıyılmış kasları 20 G'lik bir şırınga iğnesinden birkaç kez geçirerek büyük doku parçaları olmayan homojen bir süspansiyon elde edilene kadar.
- Sindirim sürecini tamamlamak için örnekleri 37 °C'de ek 30 dakika kuluçka edin.
- Kalan dokunun tamamen mekanik ayrışmasını sağlamak için 2.3 . adımı bir kez daha tekrarlayın.
NOT: Bu aşamada kas sindirimini dikkatlice gözlemleyin. Doku neredeyse tamamen ayrılmış olmalı, minimum görünür parça kalmalı ve sindirim ortamı bulanık görünmelidir. Aşırı kuluçka hücrelere zarar verir.
3. Hücre filtrasyonu
- 100 μm hücre süzgecisini 50 mL'lik konik bir tüpün üzerine yerleştirin. Süzgeçi, yüksek glikoz DMEM içeren 1 mL önceden ısıtılmış (37 °C'ye kadar) nötralize edici ortam (NM) ile önceden ıslatın; %10 fetal sığır serumu (FBS) ve %1 P/S içerir.
- Sindirilmiş kas süspansiyonunu önceden ıslanmış 100 μm süzülcünün üzerine dök. Süzgeçi ek 1 mL NM ile durulayarak kalan doku kalıntılarını temizleyin.
- Yeni 50 mL konik bir tüpte, 70 μm hücre süzgeci yerleştirin ve 1 mL NM ortamla önceden ıslatın. 100 μm süzgeçten filtreyi önceden ıslatılmış 70 μm süzgeçten geçirerek makrofajlar dahil daha büyük sızan hücreleri daha da uzaklaştırın. 70 μm süzgeci 1 mL NM ile durulayarak kalan hücreleri geri kazanın.
- Yeni 50 mL'lik konik bir tüpte, 40 μm hücre süzgeci yerleştirin ve hücre karışımını önceden ıslatılmış 40 μm süzgeçten geçirin. 40 μm süzgeçi 1 mL NM ile durulayarak kalan hücreleri geri kazanın.
- 15 mL konik bir tüp üzerinde 30 μm hücre süzgeci hazırlayın ve 1 mL NM ile önceden ıslatın. 40 μm süzgeçten filtreyi önceden ıslatılmış 30 μm süzgeçten geçirerek hücre süspansiyonunu daha da inceleyin. 30 μm süzgeçi 1 mL NM ile yıkayarak hücre iyileşmesini maksimize edin.
- Toplanan hücre süspansiyonunu 300 × g ile RT'de 15 dakika boyunca santrifüj yapın. Tüpün tabanında bir beyaz hücre pelletinin göründüğünü doğrulayın. Steril bir biyogüvenlik dolabının altında çalışırken, süpernatantı (sindirim ortamı) dikkatlice çıkarıp at.
NOT: Santrifüjlemeden sonra, hücre pelleti myoblast proliferasyon ortamında (MPM) yeniden süspansiyona getirilebilir ve ya doğrudan 5 . bölüme mioblast zenginleştirmesi için ilerleyebilir ya da isteğe bağlı olarak, miyoblast popülasyonunun saflığını artırmak için manyetik aktive hücre ayırtına (MACS, aşağıda açıklanan) tabi tutulabilir.
4. (İsteğe bağlı) Manyetik aktif hücre sıralaması
- 3.6. adımda elde edilen hücre pelletini, 1x PBS (pH 7.2), %0.5 FBS ve 2 mM EDTA'dan oluşan taze hazırlanmış MACS ayırma tamponunda yeniden askıya alın. Orijinal doku için gram başına 80 μL tampon kullanın.
NOT: İşlem boyunca MACS sıralama tamponunu 2-8 °C olarak tutun. - 1 g'a kadar doku başına uydu hücresi izolasyonu için 20 μL manyetik etiketleme reaktifi eklenin.
NOT: 1 g'den küçük örnekler için, 1 g için belirtilen aynı reaktif hacimlerini kullanın. 1 g'den büyük örnekler için, tüm reaktif hacimlerini orantılı olarak ölçeklendirin (örneğin, 2 g doku için reaktif hacminin 2 katı kullanın). - Numuneyi nazikçe karıştırarak homojen etiketleme sağlanır ve 2-8 °C sıcaklıkta 15 dakika boyunca buz üzerinde kuluçka yapın.
- İnkubasyon sonrası, 5 g'a kadar dokudan alınan örnekler için toplam hacmi MACS ayırma tamponu ile 500 μL'ye ayarlayın. Daha büyük doku miktarları için, optimal ayırma verimliliğini korumak için süspansiyonu birden fazla tüpe eşit şekilde bölebilirsiniz.
- Manyetik ayırma ve uydu hücre toplama
NOT: Üreticinin talimatlarına göre manyetik hücre ayırma sistemi kullanarak manyetik ayırma işlemi yapılmalıdır.- Manyetik ayırıcının manyetik alanına bir ayırma kolonu yerleştirin. Ayırma kolonunu 3 mL ayırma tamponu ile yıkayarak numune uygulamadan önce dengelendirin.
- Etiketlenmiş hücre askısını sütuna uygulayın ve uydu hücresi zenginleştirilmiş popülasyonu içeren eluent fraksiyonunu toplayın.
- Kolonu iki ardışık 1 mL ayırma tamponu ile yıkayın. Her aliquot'u ancak sütun rezervuarı boşaldıktan sonra ekleyin. İçinden geçen hücreleri toplayın ve 4.5.3 adımındaki eluent ile birleştirin.
- Birleşik hücre süspansiyonunu RT rejiminde 300 × g ile 10 dakika boyunca santrifüjlenerek izole uydu hücrelerini MPM'de pellet edin.
5. Myoblast arındırması (ön kaplama adımı)
- Kolajen kaplı plakalar hazırlayın.
- Tip I sıçan kolajenini 20 mM asetik asitte (steril damıtılmış suda çözünmüş) 50 μg/mL çalışma konsantrasyonuna kadar seyreldin ve kültür kabına ekleyin. RT'de 1 saat kuluçka yapın.
NOT: ≈80 cm2 yüzey alanına sahip 100 mm plakayı kaplamak için yaklaşık 5 mL 50 μg/mL kolajen gereklidir. - Tabaklardan dikkatlice solüsyonu üfleyin.
- Plakaları 3 kez steril 1x PBS ile eşit hacimde iyice durulayın, böylece kalan asidi temizleyin.
NOT: Plakalar hemen kullanıma uygundur veya ihtiyaç duyulana kadar hava kurutulup 2-8 °C sıcaklıkta saklanabilir.
- Tip I sıçan kolajenini 20 mM asetik asitte (steril damıtılmış suda çözünmüş) 50 μg/mL çalışma konsantrasyonuna kadar seyreldin ve kültür kabına ekleyin. RT'de 1 saat kuluçka yapın.
- 3.6. veya 4.5.4. adımda elde edilen hücre pelleti, 10 mL myoblast proliferatör ortamda (MPM) 37 °C'ye kadar önceden ısıtılmıştır.
- Yüksek glikoz DMEM, %20 FBS, %10 at serumu (HS), %0,5 tavuk embriyosu ekstraktı (CEE), steril damıtılmış H2Oiçinde çözünmüş 20 ng/mL temel fibroblast büyüme faktörü (bFGF) ve F10 ortamı içeren yeni doğunan fare miyoblastları için %1 P/S veya MPM (yenidoğan kültürü için daha kontrollü ve seçici büyümeyi destekler) içeren yetişkin fare miyoblastları için MPM hazırlanın, bu oranda daha fazla fibroblast içerir), %20 FBS, %10 HS, %0,5 CEE, 20 ng/mL bFGF ve %1 P/S.
NOT: bFGF'yi doğrudan kültür ortamına ekleyin ve nihai konsantrasyon 20 ng/mL'dir. bFGF, miyoblastların ayırt edilmemiş durumunu korumak ve çoğalmasını teşvik etmek için gereklidir29.
CEE ayrıca miyoblastların büyümesini ve çoğalmasını teşvik etmekle birlikte spontan miyoblast füzyonu önleyerek sağlıklı miyoblast kültürlerinin sürdürülmesinde önemli bir roloynar 14,30,31. - Kültür daha yüksek miyojenik saflığa ulaştığında (genellikle üç geçişten sonra), neonatal miyoblastlardaki ortam, yüksek glikozlu DMEM ve F10 karışımından oluşan 1:1 oranında MPM'ye ve ardından yetişkin fare miyoblastları için kullanılan standart MPM formülasyonuna geçiş yapabilir.
NOT: Başlangıçtaki saflığı önceden doğrulamak önemlidir, çünkü ortamdaki değişiklikler miyoblastların fibroblastlara göre seçici büyüme avantajını ortadan kaldıracaktır. - Hücreleri önceden hazırlayın.
- İlk ön kaplama
- Yetişkin miyoblastlar: Kolajen kaplı plakalarda tohum hücreleri. Plakayı 37 °C,CO2 kuluçka makinesinde 24 saat tutun.
- Yenidoğan miyoblastları: Hücreleri kollajen kaplı kaplara yerleştirin ve 24 saat kuluçka yapın. Kültürleri F10 ortamı ile takviye edilmiş MPM'de (bkz. bölüm 5.4), aksi belirtilmedikçe.
NOT: Bu aşamada, mikroskobik inceleme kas parçaları ve hücrelerin heterojen bir karışımını ortaya koymaktadır (Şekil 2A).
Neonatal fibroblastlar, yetişkin fibroblastlara kıyasla yüksek proliferatif kapasite, artan sitoskelet esnekliği (daha az sert aktin-miyozin ağı ve daha dinamik odak yapışma dönüşümü ile karakterizedir) ve belirgin integrin ekspresyon profilleri gösterir(32,33). Bu özellikler, kolajen gibi dışdışı hücre dışı matriks kaplamaları olmasa bile kültür yüzeylerine verimli yapışma sağlar. Bu nedenle, yenidoğan miyoblastlar için, standart kaplamasız doku kültürü plastiğinin yerine kollajen kaplı plakalar kullanılabilir, ancak bu gereken ön plaka sayısını artırabilir.
- İkinci ön kaplama
- Yetişkin miyoblastlar: 10 mL'lik serolojik pipet kullanarak, MPM'de hâlâ asılı kalan hücreleri nazikçe 37 °C'ye kadar ısıtılmış kollajen kaplı bir plakaya aktarın. Orijinal plakayı 1-2 ml sıcak MPM ile durulayın, böylece kalan bağlanmamış hücreler geri alın. Plakayı 37 °C,CO2 kuluçka makinesinde 6-8 saat boyunca tutun.
NOT: Süreç, miyojenik hücrelerin tam spektrumunu temsil eden yapışmaz hücrelerin toplanıp yeni kültür plakalarına aktarıldığından emin olmak için faz kontrast mikroskopisiyle dikkatlice izlenmelidir. - Yenidoğan miyoblastları: Kollajen kaplı plakalarda ikinci bir ön kaplamayı 16 saat daha tekrarlayın, orijinal plakayı 1-2 mL sıcak MPM F10 ile durulayarak kalan bağlanmamış hücreleri geri kazanın.
NOT: Büyük hücreler, ağırlıklı olarak fibroblastlar, kollajen kaplı plakanın altına bağlı kalacaktır (Şekil 2B ve Şekil 3).
- Yetişkin miyoblastlar: 10 mL'lik serolojik pipet kullanarak, MPM'de hâlâ asılı kalan hücreleri nazikçe 37 °C'ye kadar ısıtılmış kollajen kaplı bir plakaya aktarın. Orijinal plakayı 1-2 ml sıcak MPM ile durulayın, böylece kalan bağlanmamış hücreler geri alın. Plakayı 37 °C,CO2 kuluçka makinesinde 6-8 saat boyunca tutun.
- İlk ön kaplama
- Matrigel kaplamalı plakalarda kaplama hücreleri
- Matrigel'i soğuk DMEM ile seyrelterek %10 Matrigel çözeltisi hazırlayın. Bir dağıtıcı ucu kullanarak, plakanın yüzeyini tamamen kaplayana kadar eşit şekilde kaplayın. Matrigel'in 37 °C'de 15 dakika polimerleşmesine izin verin.
NOT: Matrigel kaplama buz üzerinde yapılmalıdır, çünkü RT hızında hızla polimerleşir. - Yapışmayan hücreleri kolajen kaplı bir plakadan Matrigel kaplı bir plakaya aktarın. Kalan hücreleri geri kazanmak için kollajen kaplı plakayı 1-2 mL sıcak MPM ile durulayın. PlakayıCO2 kuluçka makinesinde 37 °C'de 72 saat boyunca tutun.
- Yetişkin miyoblastlar için, kültürün ağırlıklı olarak 72 saat sonra yapışkan, küçük, yuvarlak miyoblastlar içerdiğini doğrulayın (Şekil 2C). Birkaç büyük, üçgen şekilli fibroblast da bulunabilir, ancak çok düşük oranda. Matrigel üzerine tohumlama yaptıktan sonra hâlâ çok sayıda fibroblast varsa, fibroblast bolluğuna bağlı olarak 2-6 saat öncelikli kaplama adımlarını tekrarlayın.
- Yenidoğan miyoblastlar için, fibroblastları çıkarmak ve miyoblast popülasyonunu ilk heterojen kültürden kademeli olarak zenginleştirmek için ön kaplama adımıyla ek geçişler yapılabilir.
- Matrigel'i soğuk DMEM ile seyrelterek %10 Matrigel çözeltisi hazırlayın. Bir dağıtıcı ucu kullanarak, plakanın yüzeyini tamamen kaplayana kadar eşit şekilde kaplayın. Matrigel'in 37 °C'de 15 dakika polimerleşmesine izin verin.
6. Miyoblastların bakımı ve genişlemesi
- Kültürde saf miyoblastları MPM'de kuluçka yoluyla koruyun, ortamı her iki günde bir değiştirin.
NOT: Hücrelerin %60-70 birleşmesini aşmasına izin vermeyin, çünkü daha yüksek yoğunluk spontan miyoblast füzyonu tetikleyebilir ve farklılaşmayı başlatabilir. - Gerekirse, hücreleri %10 Matrigel ile kaplanmış birden fazla plakaya bölerek kültürü genişletin.
NOT: Yetişkin miyoblastlar: Genellikle 2-3 geçiş önerilir, çünkü ek geçişler hücre uzamasını ve kendiliğinden füzyonu artırır. Yenidoğan miyoblastlar genellikle 5-6 geçiş geçirebilir ve önemli spontan füzyon yaşanmaz.- Myoblast popülasyonunu genişletmek için, fibroblast kontaminasyonu önemli ölçüde azaldıktan sonra, 3. pasajdan itibaren MPM'de yüksek glukozlu DMEM ve F10 karışımı 1:1 oranında kullanılır. 4. pasajda, kültür genellikle neredeyse saf bir miyoblast popülasyonundan oluşur; Neonatal fare miyoblastları için MPM'ye geçin.
7. Myoblast farklılaşması
- Hücreleri mikroskop altında görselleştirin. Hücrelerin nispeten tekdüze, küçük, yuvarlak veya iğne şeklinde olduğunu, aktif olarak çoğaldığını ve aşırı kalabalık olmadığını doğrulayın. Bu, kültürün farklılaşmaya hazır olmasını sağlar.
- Deneysel tasarım için uygun doku kültürü yüzeyini, bölüm 5.6.1'de tanımlandığı gibi %10 Matrigel ile kaplayın.
NOT: Cam yüzeylerde görüntüleme kalitesi üstün olsa da, miyojenik hücreler cam odalarda daha düşük tutunma ve canlılık göstermiştir; muhtemelen doku kültürüplastiğine kıyasla Matrigel protein adezyonu daha düşük olmasından kaynaklanmaktadır. - Hücreleri %0,25 tripsin-EDTA ekleyerek 2 mL ayırın ve CO₂ kuluçka makinesinde 37 °C'de 2-5 dakika kuluçka yapın.
- Tüm hücrelerin ayrıldığını doğrulamak için kültürü mikroskop altında inceleyin. Ayrılma tamamlandıktan sonra 2 mL nötralize edici ortam ekleyin (bkz. bölüm 3.1).
- Hücre süspansiyonunu RT rejiminde 300 × g ile 10 dakika boyunca santrifüjlenerek hücreleri pellet edin.
- Birincil miyoblastları Matrigel kaplı kültür plakalarına süzülerek tohumlayın ve 37 °C'de CO₂ kuluçka makinesinde 24 saat kuluçka yapın.
- Ertesi gün, MPM'yi yüksek glikozlu DMEM, %5 HS ve %1 P/S içeren myoblast farklılaşma ortamı (MDM) ile değiştirin.
NOT: Yüksek kaliteli miyotüp oluşumu elde etmek için, miyoblastların farklılaşma ortamına geçmeden önce %80-90 birleşimine ulaştığından emin olun. İstenilen birleşme ertesi gün ulaşılmazsa, optimal yoğunluk sağlanana kadar kuluçka devam ettirin.
8. Miyoblastlar ve miyotüplerin immünbonize edilmesi
- Hücreleri 1x PBS ile 2 kez yıkayarak kalan ortamı çıkarın.
- Hücreleri %4 paraformaldehit (PFA) ile 1x PBS'de 15 dakika RT'de sabitleyin. Aksi belirtilmemişse, RT'de ek adımlar yapılacaktır.
NOT: PFA toksiktir. PFA çözeltilerini her zaman eldiven, laboratuvar önlüğü ve göz koruması takarak kimyasal bir buhar davlumunda kullanın. Cilt veya gözlerle doğrudan temas kurmaktan kaçının. PFA içeren atıkları kurumsal kimyasal ve biyotehlike düzenlemelerine uygun olarak bertaraf etmelidir. - Sabit hücreleri 50 mM amonyum klorür (NH₄Cl) ile 30 dakika RT'de (tercihen bir shaker üzerinde, 50-100 rpm) kuluçka edin; böylece serbest aldehit grupları söndürülür ve sonraki boyama aşamalarında spesifik olmayan bağlanmayı azaltır.
- Hücreleri RT'de 3 x 5 dakika boyunca 1x PBS ile (bir shaker üzerinde, 50-100 rpm) yıkayın.
- Hücrelerin permeabilizasyonunu %0,2 Triton X-100 ile 1x PBS'de 10 dakika boyunca (bir shaker üzerinde) gerçekleştirin.
- Hücreleri 1x PBS ile (bir shaker üzerinde) 2-3 x 5 dakika boyunca yıka.
- Hücreleri bloklayıcı çözeltide (%2 at serumu içinde %0,02 Triton X-100 içerir) 1,5 saat RT'de (bir shaker üzerinde, 50-100 rpm) inkübe ederek spesifik olmayan antikor bağlanmasını engelleyin.
- Hücreler gece boyunca 4 °C'de primer antikorlar seyreltilerek inkubasyon edilir (Pax7 - 1:100; MHC - 1:50) bloklama çözümünde (bir shaker üzerinde, 50-100 rpm).
- Hücreleri 3 x 10-15 dakika boyunca 1x PBS ile (0,02% Triton X-100 içerir, 50-100 rpm) yıkayın.
- Hücreleri, uygun ikincil antikorlarla 1:250 oranında bloklayıcı çözelti olarak 1:1,5 saat boyunca RT'de (bir shaker üzerinde ve ışıktan korunarak) inkubasyon yapın.
- Hücreleri 3 x 10-15 dakika boyunca 1x PBS ile %0,02 Triton X-100 (bir shaker üzerinde, 50-100 rpm) yıkayın.
- Örnekler, deneysel tasarımda belirtildiği gibi uygun bir montaj ortamı ve bir kapak kaydırması kullanılarak monte edilsin.
- Uzun süreli depolama için, monte edilmiş örnekleri ışıktan korunarak 4 °C'de tutun.
Sonuçlar
Bu protokolün başarılı uygulanması, hem yetişkin hem de yenidoğan farelerin arka uzuv kaslarından türetilen, morfolojik olarak belirgin ve son derece canlı, birbirinden ayrılan primer miyoblast kültürleri ortaya çıkarır. Gözenek boyutları azalan hücre süzgeçleri aracılığıyla ardışık filtrasyonu isteğe bağlı manyetik aktifleşmiş hücre sıralaması (MACS) ile birleştirerek, bu protokol yüksek saflıkta bir miyoblast popülasyonunun izole edilmesini sağlar. İzole edilmiş Pax7+ hücrelerinin saflığını daha da artırmak için optimize edilmiş bir ön kaplama aşaması uygulanmıştır. Bu adımdan sonra (protokol bölümü 5), çoğu fibroblast ve diğer miyojenik olmayan hücreler başlangıçta kolajen kaplı yüzeye yapışmış kalır (Şekil 3), miyoblastlar ise süspansiyonda kalır ve ardından Matrigel kaplamalı plakalara bağlanır (Şekil 2B). Yüksek serum konsantrasyonu, bFGF ve tavuk embriyosu ekstraktı (CEE) takviyesi ve Matrigel kaplama kullanımı gibi miyoblast proliferasyon ortamının (MPM) belirli bileşenlerinin daha önce kanıtlanmış etkinliği üzerine inşa edilen bu formülasyon, miyoblastlar için miyojenik olmayan hücrelere göre belirgin bir proliferatif avantajsağlar 14,30,31,35 . Bu nedenle, MPM'de kültürden 72 saat sonra, yüksek nükleer-sitoplazmik orana sahip küçük, yuvarlak veya iğne şeklinde miyoblastlar baskın olmalıdır (Şekil 2C). Genellikle kültürün %3'ünden azını oluşturan büyük, yassılaştırılmış fibroblast benzeri hücrelerden oluşan küçük bir popülasyon kalabilir.
Bu protokolle izolasyondan 72 saat sonra hücre verimi, donör hayvanların yaşına bağlıdır. Her iki bacaktan dört arka uzuv kası (gastrocnemius, soleus, tibialis anterior ve extensor digitorum longus) kullanılarak bir yetişkin fareden izole edilen miyoblastlar için, tipik verim hayvan başına yaklaşık 2-4 × 10⁶ hücredir. Yetişkin (**p < 0.01) ve yenidoğan farelerden (***p < 0.0001) izole edilen hücrelerin %97'sinden fazlası, Pax7+ ekspresyonuyla (Şekil 4A,B) miyojenik öncüllerdi; bu da miyojenik öncüllerin yüksek zenginleşmesini doğrulamaktadır. Bu Pax7 tabanlı saflık değerlendirmesi, ön kaplama ve ardından MACS ve/veya genişletme dahil olmak üzere tam zenginleştirme iş akışının tamamlanmasından sonra yapıldı ve erken yapışan ön plaka fraksiyonlarında değil.
Neonatal miyoblastlar, MACS ile veya MACS olmadan yüksek saflığa ulaştı (Şekil 4A,B), bu protokolü farklı teknik destek seviyelerine sahip laboratuvarlar için uygun kılar. Ancak MACS çıkarıldığında, benzer saflığa ulaşmak için ek ön kaplama adımları gereklidir.
Yetişkin miyoblastlar için, MACS ile sıralanmış popülasyonların doğrudan istatistiksel karşılaştırması yapılmadı. Ancak, daha düşük proliferatif kapasite ve daha fazla farklılaşma taahhüdü göz önüne alındığında, MACS'in yalnızca preplate'e kıyasla zenginleştirmeyi artırması beklenmektedir.
%80-90 birleşime ulaştıktan sonra farklılaşma ortamına (MDM) geçtiklerinde, miyoblastlar verimli bir şekilde birleşerek 48-72 saat içinde uzun, çok çekirdekli miyotüpler oluşturur. Bu miyotüpler faz kontrast mikroskopisiyle kolayca görselleştirilir (Şekil 2D) ve miyozin ağır zinciri (MHC) için immünboyama ile daha da doğrulanabilir (Şekil 5A,B). Farklılaşmış miyotüplerde organize sarkomik yapıların varlığı (Şekil 5B), bu kültür koşullarında miyojenik farklılaşmayla uyumlu yapısal olgunlaşmaya işaret eder.
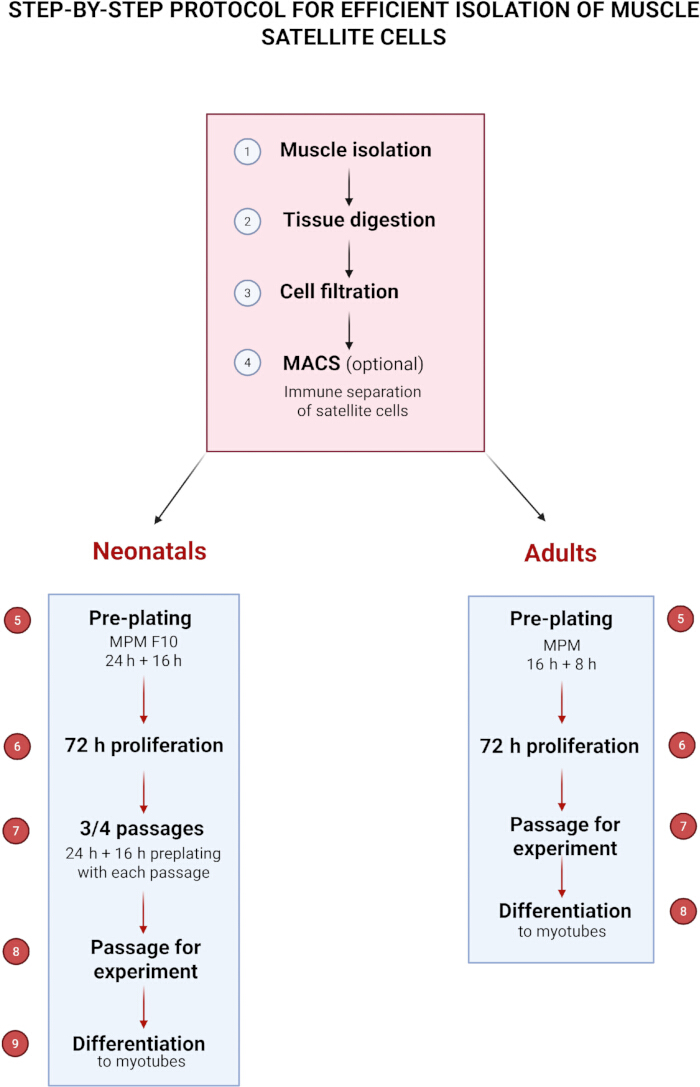
Şekil 1: Kas uydu hücrelerinin etkin izolasyonu için adım adım protokol. Bu şeklin daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
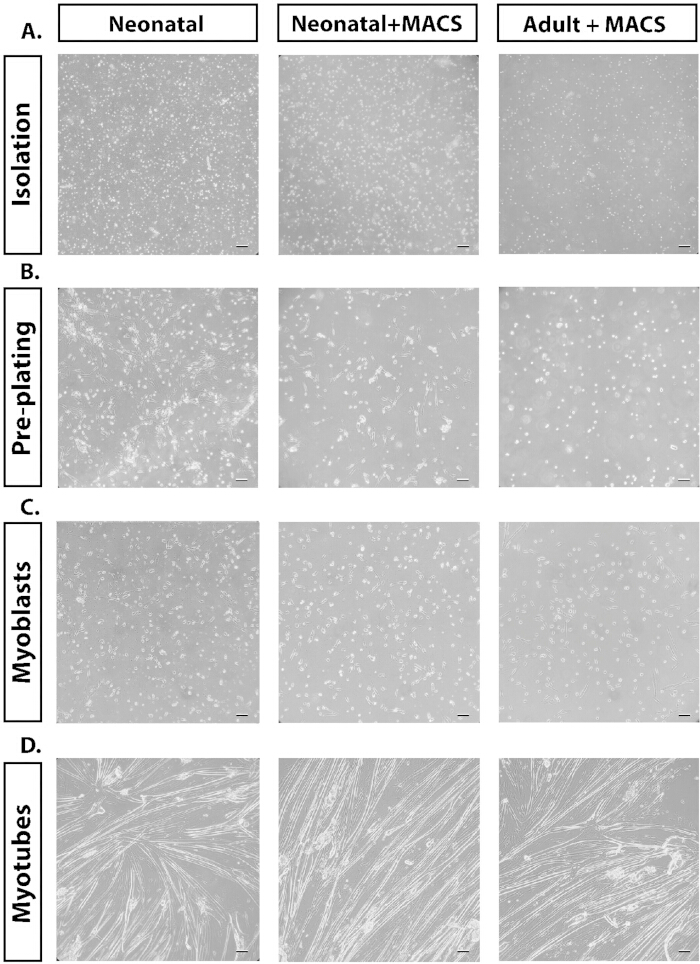
Şekil 2: Metinde tartışılan farklı metodolojilerin temsilci faz kontrast mikroskopik görüntüleri. (A) Sindirim sonrası hücrelerin izolasyonuna dair faz kontrastlı (20x) görüntüler. (B) Bağlı fibroblast ile kültürlerin önceden kaplamasının (20x) faz kontrastı ve bağlanmamış miyoblastlar. (C) Yapıştıktan sonra çoğalan miyoblastların faz kontrastı (20x). (D) Farklılaşmış miyotüplerin faz kontrastı (20x). Ölçek çubuğu = 50 μm. Bu figürün daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
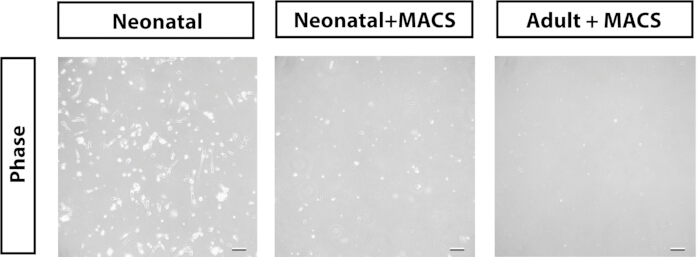
Şekil 3: İlk ön kaplama adımından sonra bağlı kalan hücrelerin temsil etkileyici faz kontrast mikroskopi görüntüleri (20×). Ölçek çubuğu = 50 μm. Bu figürün daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
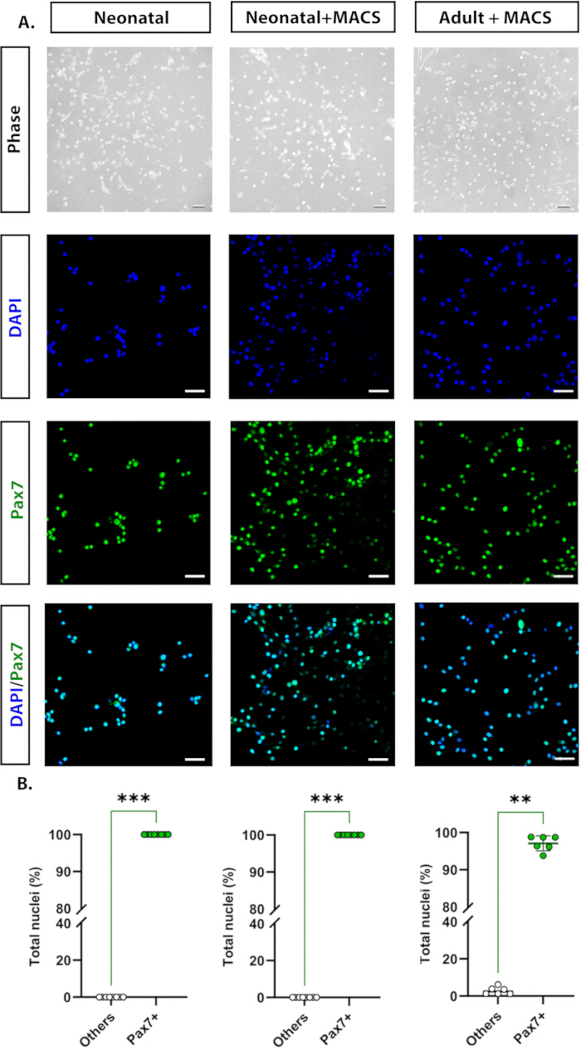
Şekil 4: Faz kontrast mikroskopu (20x) ve immünositokimya (40x) altında alınan temsil edici görüntüler. (A) Pax7+ (yeşil) ve DAPI (açık mavi) ile boyanmış çekirdekler ve birleşen kanallarda kolokalizasyonu. (B) Myoblast kültürünün saflığının analizi, elde edilen alan başına çekirdeklere normalize edilmiş Pax7+ hücrelerinin yüzdesinin nicelendirilmesi (en az altı kuyuyda, her kuyu başına bir alan). İmmünboyama en az üç kez tekrarlandı, her deney başına iki ila üç teknik kopya yapıldı. **p < 0.01, ***p < 0.0001 (İstatistiksel anlamlılık Mann Whitney U testi kullanılarak analiz edildi). Ölçek çubuğu = 50 μm. Bu figürün daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
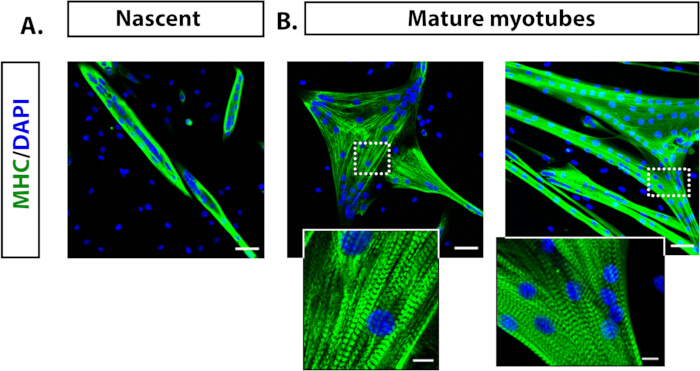
Şekil 5: Yetişkin fare miyoblastlarından farklılaşan miyotüpleri gösteren temsil etkileyici immünoflüoresans görüntüleri. (A) Gelişmekte olan miyotüpler (kültürde 3 gün) 20x MHC (yeşil) ile görüntülenmiş ve çekirdekler DAPI (açık mavi) ile boyanmış. (B) 20x derecesinde görülmüş olgun miyotüpler (kültürde 6 gün) ve miyozin boyama ile tanımlanan sarkomik desenin yapısı detayları. İmmünboyama en az üç kez tekrarlandı, her deney başına iki ila üç teknik kopya yapıldı. Ölçek çubuğu = 50 μm; yakınlaştırılmış ölçek çubuğu = 10 μm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Tartışma
Uydu hücreleri (SC'ler), iskelet kası büyümesi, onarımı ve yenilenmesinden sorumlu ana miyojenik kök ve asalpopülasyonu oluşturur 36,37. Hücre döngüsüne yeniden girip olgun miyoliflere ayrılma yetenekleri, iskelet kası biyolojisini incelemek için vazgeçilmez hale gelir. Tanımlanmış in vitro koşullarda izole edilip kültürlendiğinde, SC'ler miyoblastlar olarak çoğalır; bu hücreler farklılaşıp çoklu çekirdekli miyotüplere birleşerek in vivo gözlemlenen miyogenezin temel yönlerini özetler.
Yöntemimiz, özellikle yenidoğan dokular için özel olarak tasarlanmış enzim konsantrasyonu, sindirim süresi ve kültür koşulları gibi temel parametreleri dikkatlice ayarlayarak, son derece canlı, homojen hücre popülasyonlarının geri kazanılmasını sağlar. Enzimatik ve mekanik ayrışmanın birleşimi, ardından çok aşamalı filtreleme ve isteğe bağlı manyetik aktifli hücre ayırtma (MACS) ile ön kaplama ile birlikte yüksek hücre verimi ve saflığı sağlanır. Önemli olarak, bu protokol genellikle %97 kadar Pax7+ miyojenik öncülleri dışlayan kültürlerin üretilmesini sağlar ve bu da onları sonraki diferensiasyon testleri ve moleküler çalışmalar için uygun kılar.
Ön kaplama tekniği, fibroblastlar ve SC'lerin farklı yapışma özelliklerinedayanır 16,38,39. Bu adım, kültür saflığını belirlemede özellikle kritiktir ve zamanlama veya yıkamadaki küçük sapmalar fibroblast kontaminasyonuna veya miyoblast iyileşmesinin azalmasına yol açabilir. Tam zamanlanmış bir ön kaplama aşamasının dahil edilmesi özellikle avantajlıdır; çünkü miyojenik hücreleri fibroblastlardan ve diğer miyojenik olmayan popülasyonlardan verimli bir şekilde ayırır. Bu yaklaşım, manyetik ayırma ekipmanı olmadığında veya miyoblast kültürlerinin saflığını artırmak için ek bir önlem olarak kullanılabilir. Protokolümüzde, bu adımı kollajen kaplı plakalar ve miyojenik hücreleri fibroblastlardan ve diğer miyojenik olmayan popülasyonlardan verimli şekilde ayıran hassas zamanlanmış bir ön kaplama süresi kullanarak optimize ettik.
Mevcut protokolün bir diğer metodolojik ilerlemesi, hem yetişkin hem de yenidoğan hücreleri için optimize edilmiş tanımlanmış bir myoblast proliferasyon ortamının (MPM) kullanılmasıdır. Yüksek serum konsantrasyonu, tavuk embriyosu ekstraktı (CEE) ve temel fibroblast büyüme faktörünün (bFGF) birleşimi, farklılaşmamış bir fenotipin sürekli çoğalmasını ve korunmasını destekler. Özellikle CEE, miyoblastların canlılığını artıran ve spontan füzyonu geciktiren büyümeyi teşvik eden faktörlere katkıda bulunurken, bFGF, kanonik sinyal yollarının aktivasyonu yoluyla SC kimliğinikorur (29,31). Matrigel kaplı yüzeylerin kullanımı, hücre yapışmasını ve proliferasyon verimliliğini daha da artırır; izolasyon sonrası 72 saat içinde gözlemlenen yüksek canlılık ve morfolojik homojenliğe katkıda bulunur.
Farklılaşma ortamına geçiş zamanı, saflaştırılmış miyoblastlar kolayca çoklu çekirdekli, kasılan miyotüplere birleşerek miyozin ağır zinciri (MHC) ifade eder; bu da korunmuş miyojenik potansiyel ve yapısal olgunlaşma gösterir. Ortaya çıkan kültürler, iskelet kası yenilenmesi, hücre sinyalizasyonu, transkripsiyonel düzenleme ve hastalık modellemesi çalışmaları için son derece uygundur. Konfluensiya kritik bir faktördür; çünkü çok düşük birleşimli kültürler ilerleyemezken, aşırı yüksek birleşme mioblast füzyonu ve farklılaşmasına yol açar. Miyoblastlar, birleşme noktasına bakılmaksızın, aynı kültür kabında 5 günden fazla tutulmamalıdır, çünkü uzun süreli kuluçka da farklılaşmayı teşvik edebilir.
Bu avantajlara rağmen, bazı adımlar başarısızlık açısından hassas kalır. Enzimatik sindirim, doku ayrışmasını hücre canlılığı ile dengelemek için dikkatlice kalibre edilmelidir. Ön kaplama zamanlaması, farklılaşmadan önceki hücre yoğunluğu ve dissosiyasyon sırasında nazik müdahale, verim, saflık ve birleşme potansiyelini güçlü şekilde etkiler. Kalıcı fibroblast kontaminasyonu, düşük verim, erken farklılaşma, zayıf yapışma veya zayıf miyotüp oluşumu gibi yaygın sorunlar genellikle ön kaplama, orta takviye veya kaplama tekniğinde küçük ayarlamalarla çözülebilir.
Sorun giderme ve pratik hususlar:
İzolasyon saflığı ve enzimatik sindirim, enzim tipi, konsantrasyon, kuluçka süresi veya doku doğranma değişiklikleri hem hücre verimini hem de kültür saflığını güçlü şekilde etkileyebildiği için dikkatli bir dikkat gerektirir. Sindirimin yetersiz kalması, dokuda kısmen sağlam kalabilir, SC salınımını azaltabilir ve bir sonraki aşamada süzgeçin tıkanmasına yol açabilir; aşırı sindirim ise görsel olarak biyofilme benzeyebilir ve hücre canlılığını zayıflatabilir. Bu nedenle, tekrarlanabilir sonuçlar için dikkatli optimizasyon gereklidir.
Filtreleme ve süzgeç kullanımı da kritiktir; çünkü eksik veya verimsiz filtreleme hücre süspansiyonunda doku kalıntıları veya agregalar bırakabilir; bu da hücre tutunmasını engelleyebilir ve kültür saflığını düşürebilir. Uygun boyutta süzgeçler kullanmak, süspansiyonu nazikçe içlerinden geçirmek ve filtreleri önceden ıslatmak, hücrelere mekanik yükü en aza indirirken kalıntıların uzaklaştırılmasını iyileştirebilir. Daha büyük doku parçaları filtreyi tıkatırsa, süspansiyonu zorla geçirmek yerine yeni bir süzgeçle değiştirilmelidir; çünkü hücreler filtre yüzeyinde sıkışıp kalabilir ve verimin azalmasına yol açabilir. Gerektiğinde taze bir filtreyle tekrar filtreleme yapılması, canlı miyoblastların geri kazanımını daha da artırabilir.
Kültürler aşırı yoğunlaştığında erken veya başarısız farklılaşma meydana gelebilir; çünkü bu, spontan farklılaşmaya veya erken füzyona yol açabilir ve deneysel zamanlamayı tehlikeye atabilir. Bu nedenle, hücre yoğunluğunu izlemek ve tohumlama yoğunluğunu veya orta hacmi farklılaşmadan önce ayarlamak kritik öneme sahiptir. Aşırı birleşme durumunda, kısmi bölünme veya hafif yeniden tohumlama, istenmeyen miyotüp oluşumunu tetiklemeden çoğalmayı sürdürmeye yardımcı olabilir. Buna karşılık, istenen birleşme noktası farklılaşma başlamadan önce ulaşılmazsa, inkubasyon optimal yoğunluk sağlanana kadar devam ettirilmelidir. Miyoblastların önerilen zaman diliminin (>5 gün) üzerinde tutulması, spontan farklılaşma riskini artırır ve proliferatif kapasiteyi azaltır, başlangıçtaki birleşme ne olursa olsun. Hücre morfolojisinin düzenli değerlendirilmesi, kültür zaman çizelgelerine uyulması ve zamanında ortam değişiklikleri, hem canlılığı hem de farklılaşma potansiyelini korumak için gereklidir.
Kalıcı fibroblast kontaminasyonu, kas diseksiyonu sırasında bağ ve yağ dokusunun dikkatlice alınması dahil olmak üzere titizlikle doku işleme ile en aza indirilebilir. Ön kaplama aşamasının optimizasyonu özellikle önemlidir; çünkü hızla yapışan fibroblastlar kaplamasız yüzeylere yapışırken, SC'ler askıda kalır. Kolajen kaplı kültür plakalarının, bFGF ile takviye edilmiş tanımlanmış bir mioblast proliferasyon ortamı ile birlikte kullanılması, seçici miyoblast genişlemesini desteklerken fibroblast büyümesini sınırlar. Ek saflaştırma, MACS gibi negatif seçim stratejileri ile fibroblast popülasyonlarını azaltarak elde edilebilir. Erken fibroblast aşırı büyümesini tespit etmek ve zamanında müdahale sağlamak için düzenli mikroskobik izleme gereklidir.
Özetle, bu protokol sıralı arınma, optimize edilmiş kültür koşulları ve uyarlanabilir arıtma seçeneklerini entegre ederek primer miyoblast izolasyonunun tekrarlanabilirliğini ve verimliliğini geliştirir. Önemli olarak, yüksek zenginleştirilmiş Pax7+ hücreleri güvenilir şekilde üretir ve bu hücreler SC biyolojisi, miyojenik bağlılık ve farklılaşma dinamikleri üzerine kontrollü çalışmalar için de kullanılabilir.
Uzun süreli seri genişleme için optimize edilmiş protokollerin aksine, bu protokoller hücre davranışını değiştirebilir ve miyojenik potansiyeli ile füzyon yeteneğini azaltabilir; yöntemimiz sağlam miyojenik kimlik ve yüksek füzyon yetkinliğine sahip hücreleri korumak için kasıtlı olarak tasarlanmıştır. Bu odak, özellikle miyojenik farklılaşma ve yenilenme üzerine odaklanan deneylerde fizyolojik önem, verimli miyojenik farklılaşma ve SC özelliklerinin korunması gerektiren uygulamalar için avantajlıdır.
Açıklamalar
Yazarların beyan edecek çıkar çatışmaları yoktur.
Teşekkürler
Konfokal görüntüleme, Nencki Deneysel Biyoloji Enstitüsü'nde görüntüleme merkezi olarak hizmet veren ve Polonya Euro-BioImaging Node'un altyapısının bir parçası olan Görüntüleme Doku Yapısı ve Fonksiyonu Laboratuvarı'nda gerçekleştirilmiştir.
Bu çalışma, Polonya Ulusal Bilim Merkezi (Sonata hibesi 2022/47/D/NZ3/02737 Lilya Lehka'ya ve Sonata bis hibe 2020/38/E/NZ4/00314 Grzegorz Sumara'ya) ve Bilim ve Yükseköğretim Bakanlığı'nın Nencki Enstitüsü'ne yasal fonları tarafından desteklenmiştir. Bu çalışma, Eğitim ve Bilim Bakanı tarafından 2022/WK/05 nosayılı sözleşme (Polonya Euro-BioImaging Düğümü "Gelişmiş Işık Mikroskopisi Düğümü" Polonya) temelinde finanse edilen proje tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| %0,25 tripsin-EDTA | Gibco | 25200-056 | |
| 100 & mikro; M hücre süzücüsü | VWR | 732-2759 | |
| 30 µ M Strainer&NBSP; | Miltenyi Biotec | 130-041-407 | |
| 40 µ M hücre süzücüsü | VWR | 732-2757 | |
| 70 µ M hücre süzücüsü | VWR | 130-095-823 | |
| Asetik asit | POCH | 568760114 | dH2O içinde çözünür ve son konsantrasyon 20 mM ile sterilize edilir; m filtresi |
| Alexa Fluor 488, eşek karşıtı Tavşan | Invitrogen | A21206 | Bloklama çözeltisinde (bkz. Bölüm 8.7) 1:250 seyreltme ile çözüldü |
| Alexa Fluor 488, keçi fare karşıtı | Abcam | ab150113 | Bloklama çözeltisinde (bkz. Bölüm 8.7) 1:250 seyreltme ile çözüldü |
| Amonyum klorür (NH4Cl) | BioShop | AMC303.500 | Suda çözünerek son konsantrasyon 50 mM |
| Antifade Montaj Medyası | Vectashield | H-2000-10 | |
| Anti-PAX7 antikor | Abcam | AB187339 | Bloklama çözeltisinde (bkz. Bölüm 8.7) 1:100 seyreltme ile çözülmüş |
| Temel fibroblast büyüme faktörü | Corning | 354060 | Steril dH2O'da 10 µ stok konsantrasyonuna çözünür; g/mL |
| Betadin, 100 mg/mL | EGIS İlaç | ||
| Hücre kültür plakası, 6 kuyruk, Hücre+ | SARSTEDT | 83.3902.300 | |
| Tavuk embriyosu ekstraktı | MP Biyomedikal | 2850145 | |
| Kollajen I, fare kuyruğu | Gibco | A10483-01 | 20 mM asetik asit içinde çözünmüş; |
| Kollajenaz, tip I | Sigma | C0130-500MG | DMEM'de çözünür ve 0.2 µ ile sterilize edilir; m filtresi |
| Dissosiyasyon tüpü (nazik MACS C Tüpleri) | Miltenyi Biotec | 130-093-237 | |
| Dulbecco'nun Modifiye Kartal Ortamı, yüksek glikoz | Gibco | 31966-021 | |
| EDTA | Invitrogen | AM9260G | |
| Falcon Konik Santrifüj Tüpleri, 15 mL | Corning | 352096 | |
| Falcon Konik Santrifüj Tüpleri, 50 mL | Corning | 352070 | |
| Fetal Sığır Serumu | Gibco | 10082147 | |
| At serumu | Gibco | 26050088 | |
| Manyetik etiketleme reaktifi (Uydu Hücre İzolasyon Kiti) | Miltenyi Biotec | 130-104-268 | |
| Manyetik ayırıcı (MidiMACS Ayırıcı) | Miltenyi Biotec | 130-042-302 | |
| Matrigel | Corning | CLS356234 | DMEM'de %10 konsantrasyona ve nbsp'ye çözünür; |
| Paraformaldehit %4 PBS'de | Thermo Fisher Scientific | J61899. AK | |
| Penisilin-Streptomisin | Gibco | 15140122 | |
| Fosfat-tamponlu tuzlu sıvı | VWR | 392-0334 | |
| Ayırma kolonu (LS Sütunları) | Miltenyi Biotec | 130-042-401 | |
| İskelet Kası Miozin Antikoru, MHC | Santa Cruz | SC-32732 | Bloklama çözeltisinde (bkz. Bölüm 8.7) 1:50 seyreltme ile çözülmüş |
| TC-anten, 100 x 20 mm | SARSTEDT | 83.3902 | |
| Doku Dissosiyatörü (GentleMACS Dissociator) | Miltenyi Biotec | 130-093-235 | |
| Triton X-100 | Sigma-Aldrich | X100-1L |
Kaynaklar
- Yeh, C. -J., Sattler, K. M., Lepper, C. Molecular regulation of satellite cells via intercellular signaling. Gene. 858, 147172(2023).
- Gonzalez, M. L., Busse, N. I., Waits, C. M., Johnson, S. E. Satellite cells and their regulation in livestock. J Anim Sci. 98 (5), skaa081(2020).
- Mauro, A. Satellite cell of skeletal muscle fibers. J Biophys Biochem Cytol. 9 (2), 493-495 (1961).
- Yin, H., Price, F., Rudnicki, M. A. Satellite cells and the muscle stem cell niche. Physiol Rev. 93, 23-67 (2013).
- Kahn, R. E., Dayanidhi, S., Lacham-Kaplan, O., Hawley, J. A. Molecular clocks, satellite cells, and skeletal muscle regeneration. Am J Physiol Cell Physiol. 324 (1), C1332-C1340 (2023).
- Abreu, P., Mendes, S. V. D., Ceccatto, V. M., Hirabara, S. M. Satellite cell activation induced by aerobic muscle adaptation in response to endurance exercise. Life Sci. 170, 33-40 (2017).
- Dueweke, J. J., Awan, T. M., Mendias, C. L. Regeneration of skeletal muscle after eccentric injury. J Sport Rehabil. 26 (2), 171-179 (2017).
- Michele, D. E. Mechanisms of skeletal muscle repair and regeneration in health and disease. FEBS J. 289 (21), 6460-6462 (2022).
- Domingues-Faria, C., Vasson, M. -P., Goncalves-Mendes, N., Boirie, Y., Walrand, S. Skeletal muscle regeneration and impact of aging and nutrition. Ageing Res Rev. 26, 22-36 (2016).
- Tierney, M. T., Sacco, A. Satellite cell heterogeneity in skeletal muscle homeostasis. Trends Cell Biol. 26 (6), 434-444 (2016).
- Troy, A., et al. Coordination of satellite cell activation and self-renewal by Par-complex-dependent asymmetric activation of p38α/β MAPK. Cell Stem Cell. 11 (4), 541-553 (2012).
- Dumont, N. A., Wang, Y. X., Rudnicki, M. A. Intrinsic and extrinsic mechanisms regulating satellite cell function. Development. 142 (9), 1572-1581 (2015).
- Danoviz, M. E., Yablonka-Reuveni, Z. Skeletal muscle satellite cells: background and methods for isolation and analysis. Myogenesis. DiMario, J. X. 798, Humana Press. 21-52 (2012).
- Gharaibeh, B., et al. Isolation of a slowly adhering cell fraction containing stem cells from murine skeletal muscle by the preplate technique. Nat Protoc. 3 (9), 1501-1509 (2008).
- Benedetti, A., et al. A novel approach for the isolation and long-term expansion of pure satellite cells based on ice-cold treatment. Skelet Muscle. 11 (1), 7(2021).
- Yoshioka, K., et al. A modified preplating method for high-yield and high-purity muscle stem cell isolation. Front Cell Dev Biol. 8, 793(2020).
- Uezumi, A., Fukada, S., Yamamoto, N., Takeda, S., Tsuchida, K. Mesenchymal progenitors distinct from satellite cells contribute to ectopic fat formation. Nat Cell Biol. 12 (2), 143-152 (2010).
- Christov, C., et al. Muscle satellite cells and endothelial cells: close neighbors and privileged partners. Mol Biol Cell. 18 (4), 1397-1409 (2007).
- Elizalde, G., Munoz, A. Z., Almada, A. E. Protocol for the isolation of mouse muscle stem cells using fluorescence-activated cell sorting. STAR Protoc. 4 (4), 102656(2023).
- Pasut, A., Oleynik, P., Rudnicki, M. A. Isolation of muscle stem cells by fluorescence-activated cell sorting. Myogenesis. DiMario, X. 798, Humana Press. 53-64 (2012).
- Lee, J. D., Sinha, B. C., Larkin, L. M., Vandenburgh, H. H. Isolation and purification of satellite cells for skeletal muscle tissue engineering. J Regen Med. 3 (2), (2015).
- Llufrio, E. M., Wang, L., Naser, F. J., Patti, G. J. Sorting cells alters their redox state and cellular metabolome. Redox Biol. 16, 381-387 (2018).
- Cusmano, A. A., et al. Efficient isolation and ex vivo differentiation of murine satellite cells. Stem Cell. Turksen, K. 2939, Springer. 37-54 (2025).
- Park, Y. G., Moon, J. H., Kim, J. A. Comparative study of magnetic-activated cell sorting and preplating for myoblast purification. Yonsei Med J. 47 (2), 179-186 (2006).
- Park, Y. G., Baek, A., Kim, S. Myoblast purifying by magnetic-activated cell sorting. Methods Cell Biol. 112, Elsevier. 439-447 (2012).
- Lee, H., Han, N. R., Kim, S. J., Yun, J. I., Lee, S. T. Development of a high-yield isolation protocol for active muscle satellite cells. Int J Stem Cells. 15 (3), 283-290 (2022).
- Cui, Y., et al. An easy and practical method for isolation, culture and identification of mouse skeletal muscle satellite cells. Int J Clin Exp Med. 9, 19424-19431 (2016).
- Ding, S., et al. Characterization and isolation of highly purified porcine satellite cells. Cell Death Discov. 3, 17003(2017).
- Pawlikowski, B., Vogler, T. O., Gadek, K., Olwin, B. B. Regulation of skeletal muscle stem cells by fibroblast growth factors. Dev Dyn. 246 (5), 359-367 (2017).
- Shahini, A., et al. Efficient and high-yield isolation of myoblasts from skeletal muscle. Stem Cell Res. 30, 122-129 (2018).
- Lee, D. H., Kwak, K. B., Park, Y. C., Chung, C. H., Ha, D. B. Purification and characterization of myoblast fusion inhibitor. Mol Cells. 1, 177-182 (1991).
- Moulin, V., et al. Fetal and adult human skin fibroblasts display intrinsic differences in contractile capacity. J Cell Physiol. 188 (2), 211-222 (2001).
- Wilson, C. G., et al. Age-dependent expression of collagen receptors in rat cardiac fibroblasts. Microsc Microanal. 17 (4), 555-562 (2011).
- Kohen, N. T., Little, L. E., Healy, K. E. Characterization of Matrigel interfaces during defined hESC culture. Biointerphases. 4 (4), 69-79 (2009).
- Wang, Z., et al. In vitro culture system supporting robust expansion of myogenic progenitors. BioRes Open Access. 3 (3), 79-87 (2014).
- Péault, B., et al. Stem and progenitor cells in skeletal muscle development and therapy. Mol Ther. 15 (5), 867-877 (2007).
- Le Grand, F., Rudnicki, M. A. Skeletal muscle satellite cells and adult myogenesis. Curr Opin Cell Biol. 19 (6), 628-633 (2007).
- Rando, T. A., Blau, H. M. Primary mouse myoblast purification and transplantation. J Cell Biol. 125 (6), 1275-1287 (1994).
- Hindi, L., McMillan, J., Afroze, D., Hindi, S., Kumar, A. Isolation, culturing, and differentiation of primary myoblasts. Bio Protoc. 7 (9), (2017).
Yeniden basım ve izinler
