Bu protokol, hem sağlıklı hem de tümör taşıyan fare akciğer dokusundan yüksek kaliteli tek hücreli süspansiyonların izole edilmesi için ayrıntılı bir yöntem sunar. Bu protokol scRNA-dizi, akış sitometrisi analizi ve birincil hücre izolasyonu için uygulanabilir.
Yöntem makalesi
Akış sitometrisi ve tek hücreli RNA dizileme için tüm fare tümörü taşıyan akciğer dokusunun optimize edilmiş hazırlanması
Bu makalede
Özet
Özet
NSCLC, akciğer kanserlerinin yaklaşık %85'ini oluşturur ve Kirsten sıçan sarkomu (KRAS), NSCLC'de en sık mutasyona uğramış gendir. NSCLC'nin yönetimi son yıllarda belirgin şekilde ilerlemiş olsa da, heterojenliği ve plastisitesi hâlâ tam olarak anlaşılmamaktadır. Tek hücreli RNA dizileme (scRNA-seq), akciğer gibi karmaşık dokularda hücresel heterojenliği disseksiye etmek için temel bir araç haline gelmiştir. Ancak, tümör taşıyan akciğer dokusundan yüksek kaliteli tek hücreli süspansiyonlar üretmek zordur, özellikle tümör oluşumu sırasında dokunun fibrotik ve heterojen hale geldiği durumlarda. Başarılı scRNA-seq için temel gereksinimlerden biri, minimum işlem kaynaklı stres veya hasarla canlı tek hücrelerin hazırlanmasıdır. Burada, hem sağlıklı hem de tümör taşıyan fare akciğer dokusundan yüksek kaliteli tek hücreli süspansiyonların KrasG12D'de izole edilmesi için ayrıntılı adım adım bir protokol sunulmaktadır; tdTomato muhabiri fare modeli. Prosedür, doku perfüzyonu, kontrollü enzimatik sindirim, hafif mekanik dissosiyasyon, kırmızı kan hücresi lizisi, filtrasyon ve canlılık değerlendirmesini içerir ve scRNA-seq öncesinde >%85 canlı hücrelere ulaşır. Son olarak, tdTomato+ tümör hücreleri FACS ile verimli bir şekilde izole edilir ve bu protokol kullanılarak scRNA-seq ile ayrı kümeler halinde tespit edilebilir.
Giriş
Akciğer kanseri, dünya genelinde kanserle ilişkili ölümlerin önde gelen nedenlerinden biridir. Genel olarak iki ana alt tipe ayrılabilir: küçük hücreli akciğer kanseri (SCLC) ve küçük hücresiz akciğer kanseri (NSCLC)1. NSCLC, tüm akciğer kanseri vakalarının yaklaşık %85'ini oluşturur ve adenokarsinom en yaygın histolojik alttip 2'dir. NSCLC için terapötik stratejiler son on yıllarda önemli ölçüde gelişmiş olsa da, akciğer kanseri ölüm oranı yüksekkalmaktadır 3. Kemoterapi ve immünoterapi, klinik uygulamada kullanılan iki ana tedavi yöntemidir; ancak birçok hasta ilaç direnci yaşar veya immünoterapi 4,5'e yanıt veremez.
Tümör mikroçevresi (TME), tümörün başlangıcı, ilerlemesi ve terapötik dirençte kritik bir roloynar 6. Artan kanıtlar, TME'nin bileşiminin zamanla dinamik olarakdeğiştiğini göstermektedir 7,8. Anti-tümör bağışıklık hücreleri genellikle tümörgenezin erken evrelerinde TME'de zenginlenirken, immünosupresif ve kanserle ilişkili hücre popülasyonları tümör geliştikçe baskınhale gelir 9. Bu nedenle, akciğer kanseri ilerlemesi sırasında TME'nin heterojenliğini ve plastisitesini anlamak, hastalık mekanizmalarını aydınlatmak ve terapötik sonuçları iyileştirmek için gereklidir.
Tek hücreli RNA dizileme (scRNA-seq), bireysel hücre düzeyinde gen ekspresyonunun yüksek çözünürlüklü profillenmesini sağlar ve karmaşık doku transkriptomlarının kapsamlıkarakterizasyonunu sağlar 10. Bu teknik, hücresel heterojenliği incelemek ve akciğer kanserinde tümör ilerlemesi ile ilaç direncinin altında yatan mekanizmaları belirlemek için vazgeçilmezhale gelmiştir 11. Yüksek kaliteli tek hücreli süspansiyon hazırlamak, başarılı scRNA-dizamının kritik bir bileşenidir; çünkü dissosiyasyon sırasında hücre stresi veya hasarı yanlış sonuçlara yol açabilir12,13.
Bu protokol, tüm tümör taşıyan akciğerlerden arındırılmış tüm tek hücrelerden alınan RNA'nın dizilenmesini sağlar; hücre büyüklüğünden bağımsız olarak ve canlı hücre alt popülasyonlarını atmadan yapar. Daha önceki birçok çalışma, tümör taşıyan akciğerlerin tek hücreli dizilenmesini rapor etmiş; bu dizileme tümör hücrelerine odaklanmış ve CD45+ hücreleriatılmış 14,15,16 ya da bağışıklık hücreleri veya diğer spesifik hücretipleri 17 ve atılmış tümör hücrelerine odaklanmıştır. Bu protokol, tüm fare tümörü taşıyan akciğer dokusundan tüm hücre tiplerini etkili bir şekilde ayırmayı, kötü huylu hücrelerin salınmasını ve normal hücrelerin yaşamını korumayı amaçlamaktadır. Tüm canlı tek hücreleri dahil ederek, bu protokol tümör taşıyan akciğer mikroçevresindeki tüm ilgili hücre tiplerinin, kanserle ilişkili makrofaj benzeri hücreler (CAML) dahil olmak üzere incelenmesini sağlar. Belirli hücre popülasyonlarının kalite kontrolü ve zenginleştirilmesi için isteğe bağlı floresans-aktive hücre ayırma (FACS) adımları da dahil edilmiştir. Antikor boyama, 4',6-diamidino-2-fenilindol (DAPI) etiketleme ve hemen ayırma mümkün olmadığında kısa süreli fiksasyon prosedürleri için ek rehberlik sağlanmaktadır.
Bu protokolün potansiyel bir sınırlaması, erken evre tümörler içeren ve tümör yükü %40'ın altında olan akciğer dokuları için optimize edilip doğrulanmış olmasıdır. Daha yüksek dereceli tümörler içeren veya tümör yükü %50'yi aşan akciğerlerde, yoğun stromal bileşenler ve yaygınfibroz 19,20 nedeniyle dissosiyasyon verimliliği zayıflayabilir; bu da malign hücrelerin tam salınımını engelleyebilir.
Protokol
Tüm hayvan ile ilgili deneyler, Scripps Araştırma hayvan bakımı ve kullanımı yönergelerine uygun olarak gerçekleştirildi ve Scripps Araştırma Kurumu Hayvan Bakımı ve Kullanımı Komitesi tarafından protokol #10-0019 kapsamında onaylandı. KrasLSL-G12D/+; TdTomato+/- fareleri, KrasLSL-G12D/+ farelerinin TdTomato raporlayıcı fareleriyle çaprazlanmasıyla oluşturuldu. Dokuz veya on haftalık KrasLSL-G12D/+; TdTomato+/- fareleri akciğer kanseri modelleri olarak kullanıldı. Lentivirüs ile intratrakeal olarak enfekte olurlar; Cre rekombinazını ifade eden lentivirüs ile fare başına 5 × 10⁻⁵ plak oluşturan birim olur. Tümör taşıyan akciğer dokuları 25. haftadan sonra toplandı. Olası sindirim sorunları ve sorun giderme konuları Ek Tablo 1'de listelenmiştir. Reaktifler ve kullanılan ekipmanlar Malzeme Tablosu'nda listelenmiştir.
1. Tamponların Hazırlanması
- DMEM/F12 ortamı: DMEM/F12 ortamında %2 (v/v) ısıyla inaktive edilmiş FBS hazırlayın.
- Hücre yıkama tamponu: Ca+/Mg+ serbest PBS (pH 7.4) içinde %2 (v/v) ısıyla inaktive edilmiş FBS hazırlayın.
- Perfüzyon tamponu: Önceden soğutulmuş Ca+/Mg+ serbest PBS (pH 7.4).
- Enzim stok çözeltileri: 10 mg (1600 U/mg) kollagenaz IV'yi 1 mL DMEM/F12 ortamında çözünerek 16000 U/mL kollagenaz IV stok çözeltisi elde edilir; 42 mg (1,19 U/mg) Dispase II'yi 1 mL DMEM/F12 ortamında çözerek 50 U/mL Dispase II stok çözeltisi elde edilir; 5 mg DNase I'yi 1 mL DMEM/F12 ortamında çözerek 5 mg/mL DNase I stok çözeltisi elde edin.
- Sindirim ortamı: 250 μL kollagenaz IV, 200 μL Dispaz II ve 100 μL DNase I stok çözeltilerini 5 mL DMEM/F12 ortamında karıştırarak nihai konsantrasyon olarak 800 U/mL kollagenaz IV, 2 U/mL Dispase II ve 0.1 mg/mL DNase I elde edilir.
- Yeniden süspansiyon tamponu: 1 μL 0.5 M EDTA (10 μM), 1 mL ısıyla inaktive edilmiş FBS (%2 v/v) 50 mL Ca+/Mg+ serbest PBS (pH 7.4) içinde karıştırın.
- BSA stok çözeltisi: 0,5 g BSA'yı 100 mL Ca+/Mg+ serbest PBS'de çözerek %0,5 (w/v) BSA stok çözeltisi elde edilir.
- FACS tamponu: 2.5 mL 1 M HEPES, 200 μL 0.5 M EDTA 100 mL BSA stok çözeltisinde karıştırarak 25 mM HEPES ve 1 mM EDTA nihai konsantrasyon elde edilir.
2. Fare akciğer dokusunun toplanması
NOT: Tüm cerrahi aletler örnekler arasında %70 etanol ile dezenfekte edilir. Her adım arasında örnekler buz üzerinde tutulur ve tüm plastik ürünler DNaz/RNase içermemiş sertifikalıdır.
- Fareyi CO2 odasında ötenazi yapın (kurumsal onaylı protokollere uygun olarak). Faresi sırt üstü, bir diseksiyon pedine yerleştirin ve ayaklarını sabitleyin. %70 etanol ile bolca sprey yapın.
- Alt karın derisi ve kaslarından 2–3 cm genişliğinde orta çizgi kesiyi yapın. Toraks kısmını dikkatlice açın ve akciğerler veya kalbi kesmekten kaçının.
- 50 mL'lik bir enjektöre güvenlik çoklu uçan 21 G iğnesini takın ve 30 mL perfüzyon tamponunu aspire edin.
- İğneyi sol ventriküle sokun ve sağ atriyumda keskin, düz makasla küçük bir kesi yapın.
- Tüm vücut21 15 mL perfüzyon tamponu ile perfüze edin.
NOT: Karaciğerin beyazlaşması, tüm vücut perfüzyonun tamamlandığını gösterir. - Akciğerleri göğüslükten çıkarın ve akciğerlere bağlı fazla dokuyukesin 22. Akciğerleri 10 mL önceden soğutmuş Ca+/Mg+ serbest PBS'ye yerleştirerek fazla kanı yıkayarak atabilirsiniz.
- Akciğerler, 500 μL buz gibi DMEM/F12 içeren 1,5 mL bir tüpe aktarın.
3. Akciğer tek hücreli süspansiyonunun hazırlanması
- Akciğer dokusunu ekstra dar düz bir makasla küçük parçalara (1–2 mm3) 2–3 dakika boyunca kesin.
- Kıyma akciğer dokusunu 5 mL sindirim ortamı içeren 6 cm'lik bir kaba aktarın.
- 6 cm'lik bir tabağı 50 rpm'de termostatik bir çalkalayıcıya 25 dakika boyunca 37 °C'de koyun. Süspansiyonu her 8 dakikada bir 1 mL pipetle karıştırın.
- 100 μm ağ süzgeçini 10 cm'lik bir kaba yerleştirin. Süzgeçi 1 mL DMEM/F12 ortamıyla önceden ıslatın.
- Sindirilmiş süspansiyonu süzgeceye aktarın. Steril bir şırıngalı pistonun kauçuk ucuyla dokuyu süzgeçten geçirin.
- 70 μm ağ süzgeçini 50 mL'lik santrifüj tüpünün üzerine yerleştirin. Süzgeçi 1 mL DMEM/F12 ortamıyla önceden ıslatın.
- Hücre süspansiyonunu bir süzgeçten geçirin ve süzgeçi 5 mL DMEM/F12 ortamıyla durulayın.
- Santrifüjle filtrelenmiş hücre süspansiyonunu 400 g'de 10 dakika boyunca 4 °C'de geçirin ve süpernatantı dikkatlice çıkarın. Hücre pelletini oda sıcaklığında 1 mL Kırmızı Kan Hücresi Liz Tamponunda 2 dakika boyunca tekrar askıya alın.
- 14 mL hücre yıkama tamponu ekleyin ve 400 g'de 4 °C'de 10 dakika boyunca santrifüj yapın.
NOT: Eğer pelet yıkandıktan sonra hâlâ kırmızıdırsa, 8. ve 9. adımları tekrarlayın. - Süpernatantı atın ve hücreleri 20 mL yeniden süspansiyon tamponuna yerleştirin.
- 10 μL tek hücreli süspansiyon ile eşit hacimde tripan mavisi karıştırın ve 10 μL karışımı hücre sayma odası slaytına ekleyin. Canlı hücre canlılığını, hücre sayısını ve tek hücre durumunu hücre sayacı kullanarak kontrol edin.
4. Akış sitometrisi analizi
- Hücreleri buz gibi soğuk FACS tamponunda yeniden süspansiyona yerleştirin ve 100 μL hücre süspansiyonunu 1,5 mL tüplere aktarın; bu tüplerde 1 μL Fc blok antikor (1:100) bulunur. Örnekleri buz üzerinde 15 dakika kuluçka yapın.
- 500 g'de 5 dakika boyunca santrifüj örnekleri alın ve süpernatantı atın. Hücreleri 200 μL CD326-APC antikoru (1:100) ile yeniden süslü bırakın ve 45 dakika boyunca 4 °C'de karanlıkta kuluçka yapın.
- 500 g'de 5 dakika boyunca santrifüj örnekleri alın ve süpernatantı atın. DAPI boyama içeren 500 μL FACS tamponunda hücreleri yeniden askıya alın (1:5000).
- Tüm örnekleri FACS tüplerine aktarın ve ışıktan koruyun.
- Numuneleri akış sitometresi kullanarak analiz edin. Aşağıdaki floroforlar kullanıldı: DAPI-V450, Tdtomato-YG585, CD326-APC. Kapı stratejisi Şekil 1'de gösterilmiştir.
Sonuçlar
Bu optimize edilmiş protokolle hazırlanan tek hücreli süspansiyonda yüksek hücre canlılığı sağlanmıştır. Tümör taşıyan akciğerler için hücre canlılığını artıran değişiklikler arasında enzim konsantrasyonunun optimize edilmesi (Ek Tablo 2), sarsıntı ve örneklerin inkubasyon sırasında 37 °C'de karıştırılması yer aldı. Ayrıca, 6. adımda ek bir 40 μm mesh süzgeci kullanılması, hücre hasarı olasılığını artıran mekanik kesme gerilimini azaltmak için ortadan kaldırıldı; ek süzgeçin dahil edilmesi çoklu oluşumu azaltabilir. Ortalama olarak, hücre canlılığı %85'i aşmış, optimizasyon öncesi ise %80'in altındaydı (Tablo 1). Hücre konsantrasyonundaki değişiklikler esas olarak akciğer boyutu ve replikalar arasında kullanılan süspansiyon ortamındaki farklılıklara bağlandı.
Bu KrasG12D tabanlı akciğer adenokarsinomu fare modelinde, tümör nodülleri mevcuttur ve tümör yükleri tümör başlanmasından yirmi beş hafta sonra %10 ile %40 arasındadeğişir. 23. İki tam akciğer tek hücreli süspansiyon, 10x Genomics platformunda scRNA-seq ile tabi tutuldu. Cell Ranger kalite değerlendirmesi, iki örnekte sırasıyla 23.488 ve 21.436 tahmini hücre tespit etti (Tablo 2). Barkod grafiki, yüksek hücre yaşamını yansıtan minimum ortam RNA kirlemesini göstermiştir (Şekil 2A,B).
Ana bileşen analizi (PCA) ve uniform manifold yaklaşımı ve projeksiyonu (UMAP), tüm ana akciğer hücre tiplerinin temsil edildiği iyi tanımlanmış kümeleri ortaya çıkardı (Şekil 3A). Temsilci belirteç genlerinin nokta grafikleri, kanonik biyobelirteçlerin karşılık gelen hücre tiplerinde yüksek şekilde eksprese edildiğini doğruladı (Şekil 3B). Ayrıca, TdTomato+ hücreleri epitelyal ilişkili kümelerde zenginleştirilmiş ve TdTomato+/EpCAM+ hücreleri FACS ile başarıyla izole edilmiştir (Şekil 1).
Özetle, bu optimize edilmiş protokol fare tümörü taşıyan akciğer dokusunun verimli bir şekilde ayrılmasını sağlar; yüksek hücre canlılığı, düşük RNA kontaminasyonu ve kapsamlı hücresel temsil sağlar.
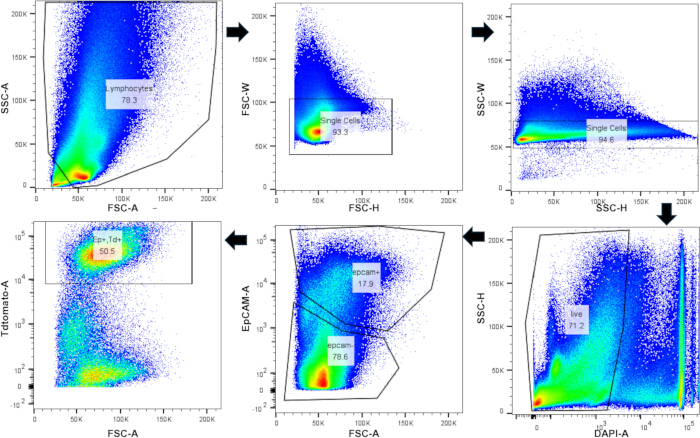
Şekil 1: TdTomato+/CD326 (EpCAM+) hücrelerinin akış sitometrisiyle izole edilmesi. Akciğer tek hücreli süspansiyon için akış sitometrisi kapı stratejisi. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
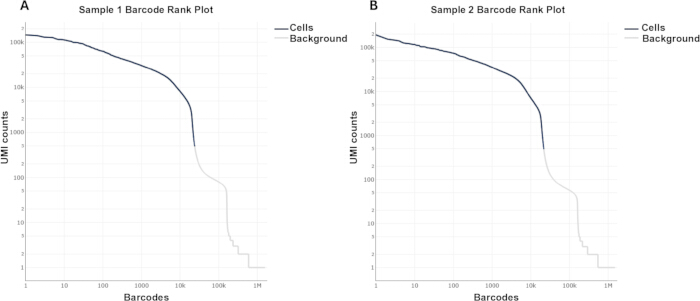
Şekil 2: Sor tümörü taşıyan akciğerlerin ScRNA-seq Barkod sıralama grafiki. KrasLSL-G12D/+; TdTomato+/- farelerinin akciğerleri, lentivirus-CRE enfeksiyonundan 25 hafta sonra toplandı. (A,B) Cellranger analizinden tümör taşıyan akciğer Barkod sıralama grafiği Lütfen bu şeklin daha büyük bir versiyonunu görmek için buraya tıklayın.
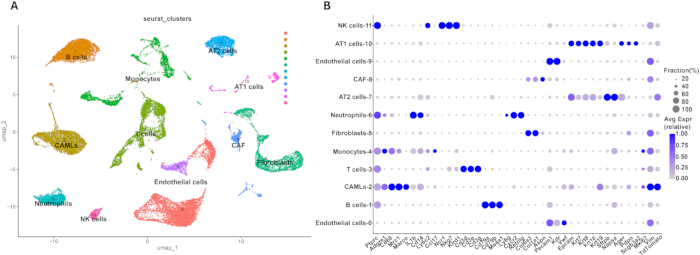
Şekil 3: Sor tümörü taşıyan akciğerlerin tek hücreli transkriptomik analizi. (A) Tüm tümör taşıyan akciğer veri setlerinin UMAP projeksiyonu. (B) Küme açıklamaları için kullanılan klasik genlerin nokta grafiği. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
| Optimizasyon öncesi | Optimizasyondan sonra | |||
| Repeat 1 | Repeat 2 | Repeat 1 | Repeat 2 | |
| Toplam hücre numarası | 1.3E+06 | 6.4E+05 | 1.8E+06 | 6.4E+05 |
| Canlı hücreler | 9.8E+05 | 5.0E+05 | 1.5E+06 | 5.7E+05 |
| Canlı hücre yüzdesi | 76% | 77% | 83% | 89% |
Tablo 1: Tümör taşıyan akciğer tek hücreli süspansiyon hücre yaşamı, optimizasyondan önce ve sonra. Bu protokol kullanılmadan önce ve sonra belirlenen hücre yoğunluğu ve canlı hücre yüzdesi.
| Örnek 1 | Örnek 2 | |
| Tahmini hücre sayısı | 23,488 | 21,436 |
| Hücre başına ortalama okuma sayısı | 18,354 | 20,542 |
| Hücre Başına Medyan Genler | 2,565 | 2,513 |
| Toplam Tespit Edilen Genler | 30,893 | 30,556 |
| Hücre Başına Medyan UMI Sayımları | 6,864 | 6,583 |
| Geçerli Barkodlar | 95.90% | 95.80% |
| Dizileme Doygunluğu | 26.10% | 28.20% |
| Hücrelerde Fraksiyon Okumaları | 94.10% | 95.40% |
Tablo 2: Cell Ranger tarafından yapılan ScRNA-seq kalite kontrol analizi. Cell Ranger'dan elde edilen tek hücreli verilerin temel tahminleri
Ek Tablo 1: Sorun giderme çözümleri. Sindirim sürecinde ortaya çıkabilecek sorunları gidermek için çözümler önerilmektedir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 2: Ön ve sonrası enzim kokteyli bileşenleri. Optimizasyondan önce ve sonra kullanılan enzim kokteylinin nihai konsantrasyonları. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu protokol, fare akciğer dokusundan yüksek kaliteli tek hücreli süspansiyonların hazırlanması için ayrıntılı adım-adım bir prosedür sunar. En iyi sonuçların elde edilmesi için birkaç kritik adım gereklidir.
Enzimatik sindirimden önce, akciğerlerden kan almak için tüm vücut perfüzyonu yapılmalıdır. Bu, scRNA-seq ile tespit edilen bağışıklık hücrelerinin dolaşımda olan kan yerine akciğer dokusundan kaynaklanmasını sağlar. Perfüzyon sırasında, perfüzyonun akciğer dolaşımına girmesini ve akciğer hücrelerine zarar vermesini önlemek için iğneyin sol ventriküle sokulması şarttır. Hücre canlılığını korumak için, yıkama, yeniden süspansiyon ve perfüzyon çözeltileri dahil tüm tamponlar buz üzerinde önceden soğutulmalıdır. Akciğerdokusunun 24 doğuştan gelen heterojenliği göz önüne alındığında, örnekler sindirim öncesi ve sırasında DMEM/F12 ortamında tutulmalıdır; çünkü bu ortam hücre canlılığını sürdüren temel besinler sağlar.
Bu protokolde gözlemlenen yüksek hücre canlılığı ve iyi tanımlanmış hücre kümeleri, enzim kombinasyonunun hem hafif hem de etkili olduğunu doğrular. Kalsiyum ve magnezyum iyonlarının hücre topaklanmasını teşvik ettiği ve enzimatik aktiviteyiartırdığı bilinmektedir 25,26. Bu nedenle, Ca+/Mg+ serbest PBS çoğu tamponu hazırlamakta ve topaklanmayı en aza indirmek için kullanılırken, bu iyonları içeren DMEM/F12, dengeli enzimatik verimliliği korumak için sindirim tamponu için bazal ortam olarak kullanılır.
Önceki çalışmalar, fare akciğerleri veya tümör dokularının dissosiyasyonunu tarif etmiş olsa da, genellikle önemli değişkenlik veya proteaz seçimi ve konsantrasyonu 11,15,27 olarak eksik bir tanım gösterirler. Örneğin, Han ve ark.11, konsantrasyon bildirmeden enzim kokteylleri kullanmış, bu da çoğaltmayı zorlaştırır. Buna karşılık, Chen ve ark.28 tarafından tanımlanan son derece özel bir yöntem, Alveolar Tip II (AT2) hücrelerinin ayrıştırılması için etkilidir ancak aynı anda birden fazla fare toplanması gerekirse pratik olmayan karmaşık bir iş akışı içerir.
Akciğer onkolojisi araştırmalarında kritik bir zorluk, hem kırılgan normal hücrelerden hem de kötü huylu tümör hücrelerinden oluşan tümör taşıyan akciğerin yapısal heterojenliğidir. Standart protokoller veya ticari kitler genellikle normal doku veya tümör örnekleri için özel olarak tasarlanmıştır. Ya sindirim eksikliği, tümör çekirdeğinden kanser hücrelerinin salınamaması ya da aşırı sindirim ile sonuçlanır; bu da tümör taşıyan akciğer örneklerindeki daha hassas normal dokuda önemli stres ve hücre ölümüne yol açar.
Bu protokol, dengeli bir ayrışma sağlamak için enzimatik kokteyl (Kollagenaz IV, Dispaz II ve DNaz I) ince ayarlayarak bu durumu ele alır. Bu optimizasyon, normal hücrelerin yaşamını korurken kötü hutlu hücrelerin salınmasını sağlar. Bu, iki farklı epitel hücresini başarıyla tespit edip çözdüğümüz akış sitometrisi analiziyle desteklenmektedir. Epitel hücreleri iyi ayrılarak TdTomato+ veya TdTomato- hücrelerine ayrılmıştır. Bu çözünürlük seviyesi, bu yöntemin konak dokunun bütünlüğünden ödün vermeden tüm tümör taşıyan akciğer mikroçevresini incelemek için uygun olduğunu gösterir. Tüm canlı tek hücreleri analize dahil ederek, bu protokol tümör taşıyan akciğer mikroçevresindeki tüm ilgili hücre tiplerinin, kanserle ilişkili makrofaj benzeri hücreler (CAML) dahil olmak üzere, önceki çalışmalarda yaygın olarak bildirilmemiş (Şekil 3) incelemesinimümkün kılar (Şekil 3).
Sindirim sonrası scRNA-seq analizleri, bu işlemin çeşitli hücre tiplerini başarıyla izole ettiğini göstermiştir. Enzim çözeltileri deney günü taze hazırlanmalıdır. Tüm sindirim parametreleri tek bir tam fare akciğeri için optimize edilmiştir. Sadece tek bir lob veya birden fazla akciğer kullanıldığında, sindirim süresi yüksek hücre canlılığı ve tam doku ayrışması için ayarlanmalıdır. Çevresel RNA kirlenmesi ve çoklu oluşum, scRNA-dizeq kalitesini etkileyen iki anafaktördür 29. Ölü hücre çıkarma kitleri genellikle canlılığı artırmak için kullanılsa da, bu protokol sindirimden sonra canlı hücrelerin %80'inden fazlasını tutarlı olarak sağlar ve bu adımı isteğe bağlı kılar. Barkod sırası grafiki, ölü hücre çıkarılması olmadan bile ortamda minimum RNA kirlenmesini doğruladı.
Mevcut çalışma, tüm tümör taşıyan sare akciğeri bağlamında bu metodolojiyi doğrulamaktadır. Bu optimize edilmiş enzimatik sindirim, benzer mikro ortamlarla karakterize edilen çeşitli tümör taşıyan dokuları incelemek için bir şablon sağlar. Ayrıca, bu protokolle elde edilen yüksek hücre canlılığı ve tüm hücre tiplerinin korunması, yüzey protein haritalaması için CITE-seq ve epigenetik profilleme için ATAC-seq gibi gelişmiş dizileme teknolojileri için uygun kılmaktadır.
Bu protokol düşük maliyetle yüksek kaliteli tek hücreli süspansiyonlar üretse de, enzimatik sindirim sırasında süreçten kaynaklanan hücresel stres yine de ortaya çıkabilir. Stresle ilişkili gen ifade artefaktlarını en aza indirmek için, tek bir operatör aynı anda en fazla dört örneği işlememelidir.
Açıklamalar
Yazarlar, rekabet eden çıkarları olmadığını belirtirler.
Teşekkürler
Bu çalışma, Ulusal Sağlık Enstitüsü, Ulusal Göz Enstitüsü (NEI), ABD tarafından desteklenmiştir; 5R01EY026202, R01EY035333; Ulusal Diş ve Kraniofasiyal Araştırma Enstitüsü (NIDCR) R01DE031044, 2R01DE014756 ve Ulusal Kanser Enstitüsü (NCI) R01CA271500 ve 2R01CA211187 hibeleri vermektedir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| DMEM/F12 | Thermo Fisher | 11320033 | Hücre kültürü |
| Kollagenaz Tip IV | Sigma Aldich | C5138 | Sindirim enzimleri |
| Dispase II | Sigma Aldich | D4693 | Sindirim enzimleri |
| DNase I | Roche | 11284931001 | DNA'yı kaldırın |
| Falcon 70 Hücre süzgeci | Falcon | 352350 | Sindirilmemiş dokuyu çıkarın |
| Steril Makas | FST | 14088-10 | Kesilmiş dokular |
| Kırmızı kan hücresi lizis tamponu | Sigma Aldich | R7757 | Kan hücrelerini çıkar |
| Isı etkisiz FBS | Phoenix Scientific | PS100 | Hücreleri koruyun |
| Ca+/Mg+ serbest PBS | Thermo Fisher | 10010023 | Enzimleri çöz/Yıkama hücreleri |
| Safety-multifly 21G iğne | Sarstedt | 3051524 | Tüm vücut perfüzyonu |
| 50 mL şırınga | BD | 300866 | Tüm vücut perfüzyonu |
| 6 cm çanak | Corning | 430116 | Sindirim dokuları |
| 10 cm çanak | Corning | 430167 | Sindirim dokuları |
| Fc blok antikor | BD | 553141; RRID:AB_394655 | Akış sitometrisi |
| DAPI | BD | 564907; RRID:AB_2869624 | Akış sitometrisi |
| CD326 | BD | 563478; RRID:AB_2738234 | Akış sitometrisi |
| HIVmPGKCre VSVG | UI Viral Vektör Çekirdeği | Iowa-VVC-U 7556 | Lentivirous |
| ZE5 (Yeti) akış sitometresi | Bio-Rad | Akış Sitometrisi Analizi | |
| KrasLSL-G12D/+ fare | Jackson Laboratuvarı | 008179; RRID:IMSR_JAX:008179 | |
| TdTomato muhabir fare | Jackson Laboratuvarı | 007909; RRID:IMSR_JAX:007909 |
Kaynaklar
- Leiter, A., Veluswamy, R. R., Wisnivesky, J. P. The global burden of lung cancer: current status and future trends. Nat Rev Clin Oncol. 20 (9), 624-639 (2023).
- Schabath, M. B., Cote, M. L. Cancer progress and priorities: Lung cancer. Cancer Epidemiol Biomarkers Prev. 28 (10), 1563-1579 (2019).
- Sung, H., et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 71 (3), 209-249 (2021).
- Yu, H. A., et al. Poor response to erlotinib in patients with tumors containing baseline EGFR T790M mutations. Ann Oncol. 25 (2), 423-428 (2014).
- Cappuzzo, F., et al. MET increased gene copy number and primary resistance to gefitinib therapy in non-small-cell lung cancer. Ann Oncol. 20 (2), 298-304 (2009).
- Maman, S., Witz, I. P. A history of exploring cancer in context. Nat Rev Cancer. 18 (6), 359-376 (2018).
- Croci, D. O., et al. Dynamic cross-talk between tumor and immune cells in orchestrating the immunosuppressive network. Cancer Immunol Immunother. 56 (11), 1687-1700 (2007).
- Dunn, G. P., Old, L. J., Schreiber, R. D. The immunobiology of cancer immunosurveillance and immunoediting. Immunity. 21 (2), 137-148 (2004).
- Mittal, D., Gubin, M. M., Schreiber, R. D., Smyth, M. J. New insights into cancer immunoediting: Elimination, equilibrium and escape. Curr Opin Immunol. 27, 16-25 (2014).
- Papalexi, E., Satija, R. Single-cell RNA sequencing to explore immune cell heterogeneity. Nat Rev Immunol. 18 (1), 35-45 (2018).
- Han, G., et al. An atlas of epithelial cell states and plasticity in lung adenocarcinoma. Nature. 627 (8004), 656-663 (2024).
- van den Brink, S. C., et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 14 (10), 935-936 (2017).
- Denisenko, E., et al. Systematic assessment of tissue dissociation and storage biases in single-cell and single-nucleus RNA-seq workflows. Genome Biol. 21 (1), 130(2020).
- Zhao, W., et al. A cellular and spatial atlas of TP53-associated tissue remodeling defines a multicellular tumor ecosystem in lung adenocarcinoma. Nat Cancer. 6 (11), 1857-1879 (2025).
- Marjanovic, N. D., et al. Emergence of a high-plasticity cell state during lung cancer evolution. Cancer Cell. 38 (2), 229-246.e13 (2020).
- Xie, L., et al. PLVAP mediates regulation of the tumour microenvironment in early-stage lung adenocarcinoma. Clin Transl Med. 15 (12), e70532(2025).
- Fernandes, L. M., et al. A single-cell atlas of normal and KRASG12D-malformed lymphatic vessels. JCI Insight. 10 (5), e185181(2025).
- Pirrello, A., Killingsworth, M., Spring, K., Rasko, J. E. J., Yeo, D. Cancer-associated macrophage-like cells as a prognostic biomarker in solid tumors. J Liquid Biopsy. 6, 100275(2024).
- Rudnick, J. A., Debnath, J. Autophagy in host stromal fibroblasts supports tumor desmoplasia. Autophagy. 17 (12), 4497-4498 (2021).
- Nissen, N. I., Karsdal, M., Willumsen, N. Collagens and cancer-associated fibroblasts in reactive stroma. J Exp Clin Cancer Res. 38 (1), 115(2019).
- Wu, J., et al. Transcardiac perfusion of the mouse for brain tissue dissection and fixation. Bio Protoc. 11 (5), e3988(2021).
- Morton, J., Snider, T. A. Guidelines for collection and processing of lungs from aged mice for histological studies. Pathobiol Aging Age Relat Dis. 7 (1), 1313676(2017).
- Pariollaud, M., et al. Circadian disruption enhances HSF1 signaling and tumorigenesis in KRAS-driven lung cancer. Sci Adv. 8 (39), eabo1123(2022).
- Wu, F., et al. Single-cell profiling of tumor heterogeneity and microenvironment in advanced NSCLC. Nat Commun. 12 (1), 2540(2021).
- McKeehan, W. L., Ham, R. G. Calcium and magnesium ions regulate multiplication in normal and transformed cells. Nature. 275 (5682), 756-758 (1978).
- Seltzer, J. L., Welgus, H. G., Jeffrey, J. J., Eisen, A. Z. Role of Ca2⁺ in mammalian collagenase activity. Arch Biochem Biophys. 173 (1), 355-361 (1976).
- Shao, S., et al. Pharmacological expansion of type II alveolar epithelial cells promotes airway repair. Proc Natl Acad Sci U S A. 121 (16), e2400077121(2024).
- Chen, Q., Liu, Y. Isolation and culture of mouse alveolar type II cells. STAR Protoc. 2 (1), 100241(2021).
- Arceneaux, D., et al. A contamination-focused approach for optimizing single-cell RNA-seq experiments. iScience. 26 (7), 107242(2023).
Yeniden basım ve izinler
