SNRNP70 , osteoartrit (OA) için tanısal bir belirteç potansiyeli göstermektedir ve OA dokularında kontrollere göre sürekli daha düşük bir ekspresyona sahiptir. Ayrıca anti-enflamatuar etkiler gösterebilir ve bu da terapötik bir yol önerir. Gelecekteki mekanik çalışmalar, OA yönetimini ilerletmeye yardımcı olabilir.
Araştırma makalesi
SNRNP70 , Osteoartritte Fokal Yapışma İmzaları ve Kondrosit İltihabı ile Ilişkilidir
* These authors contributed equally
Bu makalede
Özet
Özet
Osteoartrit (OA), ilerleyici kıkırdak parçalanması ve sinovial iltihabla karakterize edilen dejeneratif bir eklem hastalığıdır; ancak patogenezinin temel moleküler etkenleri henüz tam olarak anlaşılmamıştır. Burada, pre-mRNA splicing için gerekli olan U1 snRNP kompleksinin temel bileşeni olan SNRNP70'nin OA ilerlemesine katkıda bulunup katkı sağlamadığı incelendi. On kamuya açık transkriptomik veri setinin analizi, SNRNP70 OA kıkırdaklarında normal kontrollere kıyasla tutarlı şekilde aşağı regulasyon edildiğini gösterdi. Meta-analiz, OA için iyi bir tanı doğruluğu gösterdi ve birleştirilmiş AUC 0.92 oldu. İnterlökin-1β (IL-1β) ile uyarlanan primer fare kondrositlerinde, SNRNP70 ifadesi inflamatuar koşullarda baskılanmıştır. SNRNP70 zorla ifade edilmesi, sadece pro-inflamatuar aracıların (IL-6 ve MMP-13) üretimini azaltmakla kalmadı, aynı zamanda önemli ekstrasellüler matriks (ECM) bileşenlerini (ACAN ve COL2A1) geri kazandı ve kondrosit göçünü ve yara iyileşmesini teşvik etti. Pearson korelasyonu ve ardından KEGG zenginleşmesi, odaklı yapışma sinyalinin SNRNP70 düzenlemesiyle ilişkili bir yol olduğunu gösterdi. Kurtarma deneyleri, SNRNP70 bu yolu aktive ederek kondrositlerin onarıcı kapasitesini en azından kısmen artırdığı fikrini destekledi. Bu bulgular birlikte, SNRNP70 daha önce tanınmayan bir inflamatuar kondrosit fonksiyonu ve kıkırdak homeostazı düzenleyicisi olarak hizmet edebileceğini göstermektedir. Ayrıca, spliceozom aktivitesi ile odaklı yapışma aracılı matris sentezi arasında mekanik bir bağlantı olasılığını gündeme getirir ve SNRNP70 OA'da aday tanı belirtemesi veya terapötik hedef olarak daha fazla değerlendirilmesini gerektirir.
Giriş
Osteoartrit (OA), ağırlıklı olarak 65 yaş ve üzeri bireyleri etkileyen yaygın bir eklem rahatsızlığıdır ve dünya nüfusunun yaklaşık %7'sinietkiler 1,2. Şaşırtıcı bir şekilde, 1990 ile 2019 yılları arasında OA'nın dünya çapındaki yaygınlığı şaşırtıcı bir şekilde %113,25 artarak 247,51 milyon vakadan 527,81 milyonayükseldi3. OA, esas olarak eklem dokularında dejeneratif değişikliklerin sinsice ilerlemesiyle karakterize edilir; özellikle kıkırdak bozulması ve sinovial iltihap 4,5,6. Özellikle, mekanik aşırı yüklenme ve zamanın kaçınılmaz akışı, patogenezine katkıda bulunan en belirgin iki riskfaktörü olarak kabul edilmiştir 7,8. Ayrıca, giderek artan sayıda çalışma, meniskal dejenerasyonun OA9'un karmaşık patolojisinde önemli bir unsur olarak oynadığı kritik rolü vurgulamaktadır. Önceki araştırmalar, meniskal lezyonlarının OA hastalarının %68 ila %90'ını etkilediğini ikna edici şekildegöstermiştir 10,11.
Moleküler düzeyde, giderek artan kanıtlar OA'nın sadece biyomekanik stres ve yaşlanmanın bir sonucu olmadığını, aynı zamanda gen düzenlemesi ve transkripsiyon sonrası kontroldeki karmaşık değişikliklerle tetiklenen bir hastalıkolduğunu göstermektedir 12,13,14. Bu mekanizmalar arasında, spliceozom çeşitli hastalık bağlamlarında giderek artan ilgi çekmiştir. İlginç bir şekilde, iltihap patogenezi üzerine kapsamlı araştırmaların odağı olmasına rağmen, spliceozomun OA'daki rolü hâlâ belirgin şekilde az incelenmiş 15,16,17. Özünde, spliceozom protein yönlendirilmiş bir metalribozim 18,19 olarak kavramsallaştırılabilir. Bu mekanizmalar arasında, RNA splicing, kondrosit fenotipi ve ECM homeostazının kritik belirleyicisi olarak ortaya çıkmıştır. Hassas splicing, kıkırdak bütünlüğü için gerekli olan yapısal ve sinyal proteinlerinin doğru ifadesini sağlarken, anormal splicing ECM dönüşümünü bozabilir, katabolik yolları teşvik edebilir ve kıkırdak dejenerasyonunuhızlandırabilir 20,21,22.
Son çalışmalar, spliceozomal proteinleri eklem dokusu homeostazının ana düzenleyicileri olarak vurgulamış, ancak bu proteinlerin OA patogenezindeki rolü büyük ölçüde keşfedilmemiştir23. Özellikle, U1 küçük nükleer ribonükleoprotein kompleksinin temel bileşeni olan SNRNP70, pre-mRNA işleme sırasında 5′ splice sitelerinin tanınmasını yönetir ve böylece spesifikekzonlar 24,25'in dahil edilmesini veya dışlanmasını etkiler. SNRNP70 düzensizliği çeşitli patolojik durumlarla ilişkilendirilmiştir, ancak kıkırdak dejenerasyonuna katkısı daha önce tanımlanmamıştır. Spliceozom aracılı düzenlemenin potansiyel hedeflerinden biri, kondrosit yapışmalarını, sitoskelet dinamiğini, hayatta kalmayı ve mekanikal transdüksiyonu kontrol etmek için mekanik ve biyokimyasal ipuçlarını entegre eden merkezi bir sinyal molekülü olan odak adezyon kinazdır(FAK). Gelişmiş FAK aktivitesi, artan odak yapışma sinyaliyle ilişkilendirilmiştir; bu da ECM sentezini ve aggrecan (ACAN) ile kollajen tip II alfa 1 (COL2A1) dahil olmak üzere kilit kıkırdak-spesifik proteinlerin yükseltmesini teşvik eder. Bu proteinler, kıkırdak yapısını ve işlevini korumak için vazgeçilmezdir ve aşağı regulasyonu OA ilerlemesinin ayırt edici bir özelliğidir.
OA'da transkripsiyonel ve epigenetik araştırmalarda ilerlemelere rağmen, spliceozom aracılı FAK regülasyonunun odak adezyon sinyalini ve ECM metabolizmasını kontrol etmedeki rolü hâlgâ belirsiz olarak belirlenmiştir. Bu gözlemlere dayanarak, SNRNP70 kondrosit davranışını ve ECM homeostazını FAK alternatif splicing ve sonrasında odak yapışma sinyalini modüle ederek etkileyebileceği yürütülmüştür. Bu fikri test etmek için ilk soru, SNRNP70 ifadenin OA'da değiştirilip değiştirilmediğiydi; Tanısal bir belirteç olarak potansiyeli değerlendirildi ve kondrositlerde inflamatuar yanıtlar ve odaklı yapışma yollarıyla olası bağlantıları araştırıldı.
Protokol
Hayvan çalışması protokolü, Guangxi Tıp Üniversitesi Etik Komitesi ve Guangxi Tıp Üniversitesi İlk Bağlı Hastanesi tarafından onaylandı (protokol kodu 202109001, NO.2022-KY-E-252).
DIKKAT: Tüm prosedürler kurumsal ve ulusal hayvan bakım yönergelerine uymalıdır. Eğitimli personel, hayvan veya örneklerle ilgilenirken PPE (eldiven, maske, laboratuvar önlüğü) giymek zorundadır. Ameliyatlar yeterli anestezi ve ameliyat sonrası izleme gerektirir. Yan etkileri (kanama, enfeksiyon, davranışsal değişiklikler) derhal bildirin. Karkasları ve kirlenmiş malzemeleri doğru şekilde bertaraf edin. Uyumdan emin olmak için düzenli tesis denetimleri yapın. Bu çalışmada kullanılan hayvanlar, reaktifler ve ekipmanların ticari detayları Malzeme Tablosu'nda listelenmiştir.
Hastalar ve gen ifade veri setleri
OA'da SNRNP70 ifade desenlerini araştırmak için, halka açık RNA dizileme (RNA-dizi) ve mikroarray veri setleri sistematik olarak Gen İfadesi Omnibus (GEO) veritabanından (https://www.ncbi.nlm.nih.gov/geo/)21 alındı. Arama stratejisi şu anahtar kelimeleri içeriyordu: "SNRNP70 OR RPU1 OR Snp1 OR U1AP OR U170K OR U1RNP OR RNPU1Z OR SNRP70 VEYA U1-70K" ile "OA" birleştirildi. Dahil etme kriterleri şu şekilde tanımlandı:(i) insan örneklerinden türetilen veri setleri; (ii) özellikle OA'ya odaklanan çalışmalar, romatoid artrit ve diğer iltihap eklem hastalıkları hariç tutulur; (iii) hem OA hem de normal kontrol (NC) gruplarında en az üç bağımsız biyolojik replikatın bulunabilirliği, böylece standartlaştırılmış ortalama farklarının (SMD) hesaplanmasını mümkün kılar. Veri işleme iş akışı: Uygun veri setleri belirlendikten sonra, ham ifade verileri ve ilgili klinik meta veriler indirildi. Mikroarray veri setleri için, prob düzeyindeki veriler sağlam çoklu dizi ortalama (RMA) algoritması kullanılarak normalleştirildi ve problar platform annotasyon dosyaları kullanılarak resmi gen sembollerine notlandı. RNA-seq veri setleri için, ham sayılar milyonda (TPM) transkript değerlerine dönüştürüldü, ardından veri setleri arasında karşılaştırılabilirliği sağlamak için log2 dönüşümü yapıldı. Birden fazla prob aynı gene eşleştiğinde, örnekler arasında en yüksek ekspresyon varyansına sahip prob korundu. Kalite kontrolü ve uyumlandırma: Farklı çalışmalarda toplu etkileri en aza indirmek için "sva" R paketinden ComBat fonksiyonu uygulandı. Ana bileşen analizi (PCA), hem düzeltmeden önce hem de sonra yapılarak toplu etki etkisinin çıkarılmasının etkinliğini değerlendirdi. Düşük kaliteli, eksik açıklamalar gösteren veya OA ile NC gruplarını ayırt edemeyen veri setleri daha fazla analizden çıkarıldı.
OA ve normal kıkırdak dokularında farklı olarak ifade edilen SNRNP70 tanımlanması
OA ile normal kıkırdak (NC) dokuları arasındaki SNRNP70 ifadesinin diferansiyel olarak değerlendirilmesi için çok adımlı analitik bir yaklaşım kullanıldı. İlk olarak, SNRNP70 için ifade verileri mevcut veri setlerinden çıkarıldı. OA ve NC grupları arasında istatistiksel karşılaştırmalar, ortalama ifade seviyelerinin anlamlı şekilde farklı olup olmadığını belirlemek için Student's t-testi kullanılarak yapıldı. SNRNP70 ayırt edici gücünü daha fazla değerlendirmek için, alıcı çalışma karakteristikleri (ROC) eğrileri GraphPad Prism 8.0 ve Sangerbox platformu (http://vip.sangerbox.com/) kullanılarak oluşturuldu. Eğri altındaki alan (AUC) hesaplanarak SNRNP70 ifade seviyelerinin tanısal verimliliği nicelendirilmiştir.
Sonrasında, bulgular birden fazla veri setinde entegre edilmek için Stata 14.0 kullanılarak bir meta-analiz yapıldı. İstatistiksel heterojenlik, Cochran'ın Q testi ve I2 istatistiği kullanılarak değerlendirildi. Heterojenlik düşük olduğunda (p > 0.01 ve I2 < %50) sabit etki modeli uygulandı; aksi takdirde, rastgele etki modeli benimsendi. Standartlaştırılmış ortalama fark (SMD) ve ona karşılık gelen %95 güven aralığı (CI), OA ve NC dokuları arasındaki diferansiyel SNRNP70 ekspresyonunu nicelendirmek için hesaplandı. Tanı doğruluğu için, Stata'daki Midas modülü kullanılarak bir tanı meta-analizi yapıldı. Bu analiz, SNRNP70 için birleştirilmiş duyarlılık, özgüllük, pozitif olasılık oranı (PLR), negatif olasılık oranı (NLR) ve tanı oranı oranını (DOR) tahmin etti. Ayrıca, tanı performansının genel bir değerlendirmesini sağlamak için özet alıcı çalışma karakteristikleri (sROC) eğrisi oluşturuldu. Son olarak, bireysel veri setleri sıralı olarak hariç tutularak toplanan sonuçların sağlamlığı ve kararlılığı değerlendirilerek hassasiyet analizleri yapıldı. Potansiyel yayın yanlılığı Deeks'in huni grafik asimetri testi kullanılarak değerlendirildi. Bu entegre analitik çerçeve kullanılarak, OA dokularındaki SNRNP70 ifadesi ve tanı potansiyeli NC dokulara kıyasla sistematik olarak değerlendirildi.
Hücre izolasyonu ve kültürü
Birincil kondrositler, doğum sonrası 2. gün Sprague–Dawley sıçanlarının eklem kıkırdaklarından izole edilmiştir. Her izolasyon için toplam altı yeni doğumlu fare kullanıldı. Hayvanlar erken doğum sonrası aşamada toplandığı için cinsiyet belirlenemedi. Her bağımsız hücre hazırlığı için, altı sıçanın tamamından kıkırdak dokuları toplanıp kültür öncesi toplanmıştır. Her bağımsız izole edilmiş kondrosit preparatı—ayrı bir hayvan setinden türetilmiş—tek bir biyolojik kopya olarak ele alındı. Aynı hücre preparatından tekrarlanan kuyular veya tekrarlanan qRT-PCR reaksiyonları dahil olmak üzere teknik kopyalar bağımsız biyolojik kopyalar olarak kabul edilmemiştir.
Kısaca, yenidoğan fareler steril koşullarda ötenazi edildi ve diz eklemleri eklem kıkırdaklarını açığa çıkarmak için disseksiye edildi. Kıkırdak dokusu mikrocerrahi makasla subkondral kemikten dikkatlice ayrılmış, yaklaşık 1 mm³ parçalara doğranmış ve ardından enzimlerle sırayla sindirilmiştir. Doku parçaları önce %0,25 tripsin–EDTA ile 37 °C'de 30 dakika boyunca kuluçka edilip, kalıntı bağ dokusu alındı. Fosfatla tamponlanmış tuzlu suyla yıkandıktan sonra, kalan parçalar serumsuz DMEM'de %0,2 kollagenaz tip II ile 4–6 saat boyunca 37 °C'de hafif çalkalama ile sindirildi. Ortaya çıkan hücre süspansiyonu 70 μm hücre süzgecinden geçirildi, 300 × g 5 dakika boyunca santrifüjlendi ve %10 fetal sığır serumu, 100 U/mL penisilin ve 100 μg/mL streptomisin ile takviye edilmiş tam DMEM'de yeniden süspansiyona getirildi. Hücreler kültür şişelerine tohumlanarak %5 CO₂ ile nemlendirilmiş bir kuluçka makinesinde 37 °C'de tutulurdu. Medya her 2–3 günde bir değiştiriliyordu. Sonraki deneylerde dedifferentsiasyonu en aza indirmek için sadece 1 veya 2 pasaj kondrositleri kullanıldı.
Kondrositlerin kimliği ve saflığı deneysel kullanımdan önce doğrulanmıştır. Morfolojik olarak, primer hücreler faz kontrast mikroskopisi altında tipik bir çokgen veya taş taşı benzeri kondrosit görünümü göstermiştir. Moleküler düzeyde, kondrosit kimliği, kıkırdakla ilişkili işaretleyicilerin (COL2A1 ve ACAN dahil) ifade edilmesiyle, Western blot kullanılarak doğrulandı. In vitro inflamatuar model için, primer kondrositler rekombinant sıçan interleukin-1β (IL-1β) ile 10 ng/mL ile 48 saat boyunca uyarılmıştır. Aynı koşullar altında kültürlenen tedavi edilmemiş hücreler normal kontrol grubu olarak hizmet verdi. SNRNP70 aşırı ifade deneylerinde, bağımsız biyolojik preparatlardan alınan kondrositler ayrı ayrı transfeksiyon edildi ve her biyolojik çoğaltma transfeksiyon, IL-1β uyarısı, RNA/protein ekstraksiyonu ve istatistiksel analiz boyunca bağımsız olarak işlendi.
Gerçek zamanlı nicel PCR (qRT-PCR)
Toplam RNA, subkonfluent kondrosit kültürlerinden (~%80 konfluensi) RNAfast200 kiti kullanılarak izole edildi. RNA saflığı NanoDrop 2000 ile değerlendirildi; yalnızca A260/280 oranı 1.8–2.0 olan örnekler kabul edildi ve bütünlük %1 agaroz jel elektroforezi ile doğrulandı. Birinci zincirli cDNA, 1 μg toplam RNA'dan qPCR RT Kit kullanılarak rastgele primerler ve dNTP'ler içeren 20 μL reaksiyonunda ters transkribe edildi. Ters transkripsiyon için termal profil 30 dakika 42 °C, ardından 5 dakika 95 °C idi. qPCR, gerçek zamanlı PCR sisteminde SYBR Yeşil bazlı premiks ile gerçekleştirildi. Her 20 μL reaksiyon, 10 μL SYBR Green Master Mix, 0,5 μL ileri ve geri primer (10 μM), 2 μL cDNA ve 7 μL nukleazsız sudan oluşuyordu. Bisiklet koşulları şunlardı: 30 saniye 95 °C, ardından 5 saniye için 40 döngü 95 °C ve 30 saniye 60 °C. Erime eğrisi analizi, tek ürün özgüllüğünü doğrulamak için amplifikasyon sonrası yapıldı. GAPDH iç referans olarak hizmet verdi ve göreli ifade 2−ΔΔCt yöntemiyle hesaplandı. Reaksiyonlar, üç bağımsız biyolojik kopya ile üçlü olarak gerçekleştirildi. Primer dizileri Tablo 1'de listelenmiştir.
Western Blot
ACAN, COL2A1 ve MMP13 protein ekspresyonu, IL-1β tedavisi ve SNRNP70 aşırı ekspresyonu sonrası kondrositlerde değerlendirildi. Hücreler, buz gibi fosfatla tamponlanmış tuzlu (PBS) ile iki kez yıkanmış ve proteaz ile fosfataz inhibitörleri içeren RIPA tamponunda lizedilmiştir. Lizatlar 30 dakika boyunca periyodik girdaplarla buz üzerinde kuluçka yapıldı, ardından 12.000 × g'de 4 °C'de 15 dakika boyunca santrifüjlendi. Temizlenmiş süpernatantlardaki protein konsantrasyonları bir BCA kiti kullanılarak belirlendi. Eşit miktarda protein (şerit başına 30 μg) %10 SDS-PAGE ile ayrılarak ıslak transferle PVDF membranlarına aktarıldı. Zarlar, TBST'de oda sıcaklığında %5 yağsız sütle 1 saat boyunca tıkandı, ardından ACAN (1:1000), COL2A1 (1:1000) veya MMP13 (1:1000) karşı primer antikorlarla 4 °C'de gece boyunca incelendi. Üç TBST yıkamasından (her biri 10 dakika) sonra, zarlar HRP ile konjuge edilmiş ikincil antikorlarla (1:5000) oda sıcaklığında 1 saat kuluçka edildi. Sinyal, ECL reaktifi kullanılarak geliştirildi ve ChemiDoc XRS+ sisteminde yakalandı. Bant densitometrisi ImageJ ile yapıldı ve tüm hedef protein sinyalleri yük kontrolü olarak GAPDH'ye normalize edildi. Veriler, kontrol grubuna karşı göreceli protein seviyeleri olarak sunulmaktadır.
Transfeksiyon
Kültürler yaklaşık %80 birleşime ulaştığında kondrositler, SNRNP70 aşırı ekspresyon plazmidi (oe-SNRNP70) ile transfekte edildi. Transfeksiyon için, hücreler her kuyu başına 2 × 10⁵ hücre bulunan 6 delikli plakalara tohumlanarak standart büyüme ortamında (%10 fetal sığır serumu ve %1 penisilin / streptomisin takviyesi olan DMEM) 37 °C'de, %5 CO₂'de tutunmak üzere bırakıldı. Transfeksiyonlar, üreticinin talimatlarına uygun olarak LipoFiter 3.0 kullanılarak gerçekleştirildi. Kısaca, her kuyu başına 2–3 μg plazmid DNA'sı 100 μL serumsuz ortamda seyreltildi ve uygun miktarda lipid reaktifiyle karıştırıldı. DNA-lipid kompleksleri, karmaşık oluşumu sağlamak için oda sıcaklığında 15–20 dakika kuluçka hale getirildi, ardından taze, serumsuz ortamda kondrositleri içeren her kuyuya nazikçe eklendi. 6 saat sonra, sitotoksisiteyi azaltmak için ortam tam büyüme ortamıyla değiştirildi.
Transfeksiyon verimliliği ve SNRNP70 ifadesi transfeksiyondan 48–72 saat sonra değerlendirildi. SNRNP70 mRNA seviyeleri, GAPDH'nin iç kontrol olarak kullanıldığı nicel gerçek zamanlı PCR (qRT-PCR) ile ölçüldü. Protein ifadesi, üreticinin protokolüne göre Simple Western Automated Western Blot System kullanılarak değerlendirildi. Kısaca, hücre lizatları hazırlandı, protein konsantrasyonları ölçüldü ve örnekler otomatik ayırma ve anti-SNRNP70 antikorlarla immünotespiti için kapiller kartuşlara yüklendi. Transfeksiyon verimliliği, SNRNP70 SNRNP70 transfekte edilen hücrelerdeki ifade, boş vektörle transfekte edilen kontrol hücrelerindeki ifadeyle karşılaştırılarak hesaplandı.
İmmünoflüoresans
İmmünfloresans, IL-1β stimülasyonundan sonra oe-SNRNP70 kondrositlerde IL-6 ve MMP-13 protein seviyelerini incelemek için kullanıldı. Kısa süreliğine, hücreler steril cam örtüklere 24 kuyu plakalarında tohumlanarak standart koşullarda kültürlenerek %70–80 birleşime ulaştı. Daha sonra oda sıcaklığında %4 paraformaldehit ile 15 dakika sabitlendi ve PBS ile üç kez yıkandı. Geçirimlilik için, oda sıcaklığında 10 dakika boyunca %0,1 Triton X-100 PBS uygulandı. Spesifik olmayan bağlanma noktaları, hücrelerin %5 sığır serum albümini (BSA) içinde PBS'de oda sıcaklığında 1 saat kuluçka altına alınmasıyla engellendi.
Bloklamadan sonra, hücreler gece boyunca 4 °C'de IL-6 ve MMP-13'e karşı primer antikorlarla (%1 BSA/PBS oranında 1:200 seyreltilmiş) inkübe edildi. Bağlanmamış birincil antikorları çıkarmak için PBS ile üç yıkamadan sonra, hücreler türe özgü florofor-konjuge ikincil antikorlarla (1:500 seyrelmiş) oda sıcaklığında karanlıkta 1 saat kuluçka edildi. Çekirdekler 5 dakika boyunca 4′,6-diamidino-2-fenilindol (DAPI) ile karşı boyama yapıldı. Örtü kağıtları, antifade montaj ortamı ile cam slaytlara monte edildi ve floresans görüntüleri floresan mikroskobu kullanılarak 20× büyütmede çekildi. Nicel analiz için, hedef proteinlerin floresans yoğunluğunu ölçmek amacıyla her örnek başına rastgele seçilmiş 10 hücre ImageJ'de analiz edildi. Her grup için ortalama floresans yoğunluğu hesaplanmış ve istatistiksel karşılaştırma için kullanılmıştır.
Hücre çizik sarılma testi
Farklı tedavi koşullarında yapay yara boşluğunu kapatma konusundaki kondrositlerin yeteneğini değerlendirmek için bir çizik yara kapanması testi yapıldı. Birincil kondrositler, 1 × 10⁻⁵ hücre yoğunluğunda 6 kuyu tabakalarına tohumlanarak yaklaşık %90 birleşime ulaşılana kadar kültürlendi. Hücre monokatmanında steril 200 μL pipet ucu kullanılarak doğrusal bir çizik oluşturuldu. Ayrılmış hücreler PBS ile iki kez yıkanarak çıkarıldı ve belirtilen tedavileri içeren taze, tam kültür ortamı eklendi. Hücreler şu gruplara atandı: normal kontrol, IL-1β ile tedavi edilen ve IL-1β artı SNRNP70 aşırı ekspresyon. Aynı yara alanının görüntüleri, tırmalamadan sonra 6 saat ve 12 saat zaman noktalarında ters mikroskopla çekildi (Ek Şekil 1). Yara kapanması, 0 saat içinde yara alanındaki ilk yara alanına göre yüzde azalması olarak aşağıdaki formül kullanılarak hesaplandı:
Yara kapanışı (%) = [(0 saatte yara alanı - belirtilen zaman noktasında yara alanı) / 0 saatte yara alanı] × 100. (1)
İstatistiksel analiz
Tüm nicel veriler, aksi belirtilmedikçe üç bağımsız biyolojik kopyadan (n = 3) ortalama ± standart sapma (SD) olarak sunulur. İstatistiksel analizler GraphPad Prism 8.0 kullanılarak gerçekleştirildi. İki grup arasındaki karşılaştırmalar için eşleşmemiş Öğrenci t-testi kullanıldı. İstatistiksel anlamlılık şu şekilde gösterildi: *p < 0.05 ve **p < 0.01.
Sonuçlar
SNRNP70 artiküler boşluğu dokularında ekspresyon
OA'daki SNRNP70 rolünü kapsamlı bir şekilde incelemek için, katı dahil etme ve dışlama kriterlerini karşılayan 10 kamuya açık RNA-seq ve mikroarray veri setinin sistematik taraması gerçekleştirildi (Tablo 2). SNRNP70 ifade seviyeleri bu veri setleri boyunca dikkatlice çıkarılıp analiz edildi. Çarpıcı bir şekilde, 10 kohortun 6'sında SNRNP70 ekspresyonun OA dokularında normal kontrollere kıyasla anlamlı şekilde azalması (p < 0.05) ve bu da tutarlı bir transkripsiyon desenini gösteriyor (Şekil 1).
Dikkat çekici olmak gerekir ki, üç veri seti (GSE114007, GSE169077 ve GSE19060) OA ve kontrol örnekleri arasında istatistiksel olarak anlamlı farklar ortaya koymadı. Bu tutarsızlıklar göz ardı edilmek yerine, analizin sağlamlığını ve güvenilirliğini artırmak için toplu düzeltme ve veri seti entegrasyon stratejileri kullanıldı. Özellikle, aynı dizileme platformlarından türetilen veri setleri birleştirilerek istatistiksel güç artırıldı. Örneğin, GSE114007 GSE89408 ile birleştirilerek GSE114007-89408 oluşturuldu, GSE169077, GSE12021 ve GSE55457 ise GSE169077-12021-55457 ile birleştirildi (Şekil 1). Bu bütünleşik yaklaşım, çalışmalar arası değişkenliği en aza indirdi ve bulguların tekrarlanabilirliğini güçlendirdi. Özetle, insan veri setlerinin analizleri, OA eklem dokularındaki SNRNP70 tutarlı şekilde aşağı regülasyonunu ortaya koymakta olup, bunun tanısal bir biyobelirteç olarak potansiyelini göstermektedir. Ancak, bu azalmanın doğrudan insanlarda splicing disregulasyonunu veya kıkırdak dejenerasyonuna mı yol açtığı belirsizdir ve tercihen insan dokusu modellerinde doğrulanmasını beklemektedir.
Klinik tanı yeteneği SNRNP70
OA'da SNRNP70 tanı değerini titizlikle değerlendirmek için, 165 OA örneği ve 125 normal kontrol verilerini entegre eden kapsamlı bir meta-analiz gerçekleştirildi. Bu, mevcut bilgilere göre, OA'da potansiyel bir tanısal biyobelirteç olarak SNRNP70'nin sistematik olarak değerlendirilmesini temsil eder. Heterojenlik analizi, veri setleri arasında anlamlı heterojenlik ortaya koydu (I2 = %72,9; p = 0.001), bu da rastgele etki modeli gerektiriyordu. Toplanan analiz, OA dokularında normal kontrol gruplarına kıyasla SNRNP70 ifadesinin sağlam ve tutarlı bir azalma olduğunu gösterdi ve standartlaştırılmış ortalama farkı (SMD) -1,07 (%95 GA: -1,34 ila -0,80) olarak belirlendi (Şekil 2A–B). İfade profillemesinin ötesinde, SNRNP70'in tanısal performansı daha da değerlendirildi. Birleştirilmiş tanı testi sonuçları, birleşik hassasiyetin 0,82 (%95 GA: 0,57–0,94) ve özbaşdaklığın 0,88 (%95 GA: 0,73–0,95) olduğunu göstererek, güçlü ayırt edici kapasitesini vurguladı (Şekil 3A). Tutarlı olarak, özet alıcı çalışma karakteristikası (SROC) eğrisi eğrisinin altında (AUC) 0,92 (%95 GÜ: 0,90–0,94) bir alan vermiştir; bu da OA hastalarını sağlıklı bireylerden ayırt etmedeki SNRNP70 doğruluğunu daha da vurgulamaktadır (Şekil 3B).
Bu bulguların sağlamlığını sağlamak için duyarlılık analizi yapıldı ve bireysel veri setlerinin ardışık hariç tutulmasının genel etki boyutunu önemli ölçüde değiştirmediği doğrulandı (Şekil 4A). Önemli olarak, hem Deek'in huni grafiki asimetri testi (p = 0.41) hem de Egger testi önemli bir yayın yanlılığı göstermemiş ve bu da sonuçların güvenilirliğini pekiştirmiştir (Şekil 4B). Bu veriler birlikte, OA'da SNRNP70 ifadesinin azaldığını göstermekte ve bunun tanısal bir biyobelirteç olarak hizmet edebileceğini öne sürmektedir. Bununla birlikte, veri setleri arasındaki heterojenlik ve bağımsız bir doğrulama kohortunun olmaması dikkat edilmesini gerektiriyor. Bu bulgular, OA tanı ve yönetiminde SNRNP70 klinik faydasını netleştirmek için daha fazla çalışmalar yapılana kadar ön hazırlık olarak kabul edilmektedir.
SNRNP70 OA'da inflamatuar gen ifadesinin modülasyonu
OA ilerlemesi sırasında inflamatuar sinyalizasyonda SNRNP70'nin düzenleyici rolünü tanımlamak için, başlangıçta kondrositlerin iyi karakterize edilmiş pro-inflamatuar sitokin olan IL-1β'ye maruz kalmasıyla in vitro OA modeli oluşturuldu. 48 saat IL-1β uyarısı sonrası yapılan qRT-PCR analizi, NC grubuna kıyasla SNRNP70 mRNA seviyelerinin anlamlı bir düşüş olduğunu göstermiştir (Şekil 5). SNRNP70 ifadesinin inflamatuar koşullarda bastırılması, kamuya açık OA veri setlerinden alınan transkriptomik verilerle tutarlıydı ve böylece SNRNP70'nin OA ile ilişkili iltihabda tutarlı olarak bastırıldığına dair sağlam kanıtlar sağladı. SNRNP70 ifadesinin geri kazandırılmasının kondrosit inflamatuar fenotipini modüle edip edemeyeceğini daha fazla araştırmak için, hücreler SNRNP70 aşırı ekspresyon plazmidi (oe-SN) kullanılarak transfekte edildi. İlginç bir şekilde, SNRNP70 zorunlu ifadesi hem transkripsiyonel hem de translasyonel değişikliklerle yansıtılan IL-1β kaynaklı iltihabı önemli ölçüde hafifletmiştir. Özellikle, qRT-PCR, oe-SN grubunda IL-1β ile tedavi edilen kontrollere kıyasla IL-6 ve MMP-13 mRNA seviyelerinde sağlam bir azalma göstermiştir (Şekil 5).
Bu moleküler bulgulara ek olarak, immünoflüoresans boyama SNRNP70'nin anti-inflamatuar potansiyeline doğrudan hücresel kanıt sağladı. IL-1β ile tedavi edilen hücrelerde, IL-6 belirgin sitoplazmik birikim gösterdi ve bu da aktive inflamatuar bir durumla tutarlıdır. Dikkat çekici bir şekilde, SNRNP70'nin aşırı ekspresyonu, IL-6 sitoplazmik boyama yoğunluğunda belirgin bir azalmaya yol açtı (Şekil 6A), böylece hücresel düzeyde inflamatuar yanıtı tersine çevirme yeteneğini ortaya koydu. Benzer bir desen MMP-13 için de gözlemlenmiştir; burada IL-1β tedavisi ekspresyonunu artırmıştır, ancak SNRNP70 aşırı ekspresyon, MMP-13 lokalizasyonunu ve sinyal yoğunluğunu belirgin şekilde bastırmıştır (Şekil 6B).
Önceki araştırmaların çoğunlukla yapısal kıkırdak hasarına odaklanmasının aksine, fare kondrositlerinden elde edilen in vitro veriler, SNRNP70 inflamatuar gen ekspresyonunun düzenleyicisi olarak işlev gördüğünü göstermektedir. Özellikle, SNRNP70 zorla ifadesi IL-1β kaynaklı pro-inflamatuar aracıları, IL-6 ve MMP-13 dahil olmak üzere, bu fare modelinde zayıflattı. Önemli olarak, bu deneyler yalnızca sıçan inflamatuar modelinde yürütüldüğü için, insan veri seti bulgularını doğrudan özetlemiyorlar. Buna rağmen, bu sonuçlar kavramsal bir çerçeve sunuyor ve SNRNP70 sadece bir splicing faktörü olarak değil, aynı zamanda iltihaplanmanın potansiyel bir modülatörü olarak da işlev görebileceğini gösteriyor—bu olasılık insan dokularında daha fazla araştırılmayı hak ediyor.
OA'da SNRNP70 ile ilişkili yolların tanımlanması
Osteoartritte SNRNP70 ekspresyonuyla ilişkili biyolojik yolları incelemek için, Pearson korelasyon analizi GSE98918, GSE117999, GSE129147, GSE51588, GSE169077_12021_55457, GSE114007-89408 ve GSE82107-19060 kamu transkriptomik veri setlerinde ayrı ayrı yapıldı. Mutlak korelasyon katsayısı (|r|) > 0.8 ve p < 0.05 olan genler, her veri setinde SNRNP70 ifadeyle anlamlı korelasyon olarak kabul edildi. Tüm veri setlerinde korelasyona sahip genlerin birleşimi oluşturuldu ve 929 SNRNP70 ile ilişkili gen ortaya çıktı.
KEGG yol zenginleştirme analizi daha sonra clusterProfiler paketi kullanılarak yapıldı ve Benjamini–Hochberg yöntemiyle çoklu testler için ayarlamalar yapıldı. Bu analiz, fokal yapışma yolu da dahil olmak üzere birkaç yolda tanımlanan genlerin önemli zenginleşmesini ortaya koydu (Şekil 7). Bu sinyal zinciri, OA ilerlemesinde kilit süreçler olan kondrosit yapışması, mekanotransdüksiyon ve ECM yeniden şekillendirilmesini düzenlediği bilinmektedir. Bu bulgular, OA veri setlerinde SNRNP70 ifadesi ile odak yapışma ile ilişkili gen ekspresyonu imzaları arasında bir bağlantı olduğunu öne sürmektedir.
SNRNP70 , odak adezyon yolu aracılığıyla inflamatuar kondrosit onarımını aracılık eder
SNRNP70'nin inflamatuar kondrositlerin yara iyileşme yeteneğindeki rolünü değerlendirmek için, primer kondrositler kullanılarak çizik yara kapanması testi yapıldı. Hücreler üç gruba ayrıldı: normal kontrol, IL-1β ile tedavi edilen ve IL-1β artı SNRNP70 aşırı ekspresyon. IL-1β uyarısı, normal kontrol grubuna kıyasla çizik boşluğunun kapanma boyutunu azalttı ve bu da iltihap koşullarında yara iyileşme kapasitesinin bozulduğunu gösteriyor. Buna karşılık, SNRNP70 aşırı ekspresyon, IL-1β ile işlenmiş kondrositlerde sadece IL-1β tedavisine kıyasla çizik boşluğunun kapanmasını teşvik etti (Şekil 8A). Bu sonuçlar toplamla, SNRNP70 aşırı ekspresyonun, IL-1β ile tedavi edilen kondrositlerin yara kapanma yanıtını artırdığını göstermektedir.
Moleküler düzeyde, Western Blot analizleri, IL-1β tedavisinin kıkırdak matris proteinleri ACAN ve COL2A1'in ekspresyonunu bastırdığını ve bozucu enzim MMP13'ün yukarı regulasyonunu teşvik ettiğini göstermiştir. Önemli olarak, SNRNP70 aşırı ifade sadece ACAN ve COL2A1 seviyelerini geri getirmekle kalmadı, aynı zamanda MMP13'ü önemli ölçüde aşağı regülasyonla da azalttı ve böylece ECM bütünlüğünü korudu (Şekil 8B). Mekanik olarak, in vitro olarak, SNRNP70'nin faydalı etkileri Fokal adezyon sinyal yolunun aktivasyonuyla yakından ilişkiliydi.
Toplamda, insan veri seti analizleri, SNRNP70'nin OA'da aşağı regülasyonlu olduğunu ve ifadesinin odak yapışma yolunda yer alan genlerle ilişkili olduğunu ortaya koyar. IL-1β uyarısına maruz kalan fare kondrositlerinde, zorla SNRNP70 ekspresyonu inflamatuar hücre onarımını ve ECM sentezini destekler ve ayrıca odak adezyon sinyaliyle ilişkilidir. Bir fare modelinden yapılan bu in vitro gözlemler önerici olsa da, insan veri setlerinden elde edilen bulguları doğrudan doğrulamazlar. Buna rağmen, bu yakınsal kanıt çizgileri, odak yapışma sinyalleri yoluyla insan OA patogenezine SNRNP70 katkıda bulunduğu bir modeli desteklemektedir—bu hipotez, şimdi insan dokularında veya insan ilgisi olan in vivo modellerde kesin onay beklemektedir.
VERİ ERIŞILEBILIRLIĞI:
Bu çalışmada kullanılan ve analiz edilen veri setleri GEO veri setinden (https://www.ncbi.nlm.nih.gov/geo/) alınmıştır. Bu çalışma sırasında üretilen veya analiz edilen tüm veriler makale içinde tam olarak sunulmuş ve tartışılmıştır. Bu çalışmanın ham verileri Ek Dosya olarak yüklenmektedir.
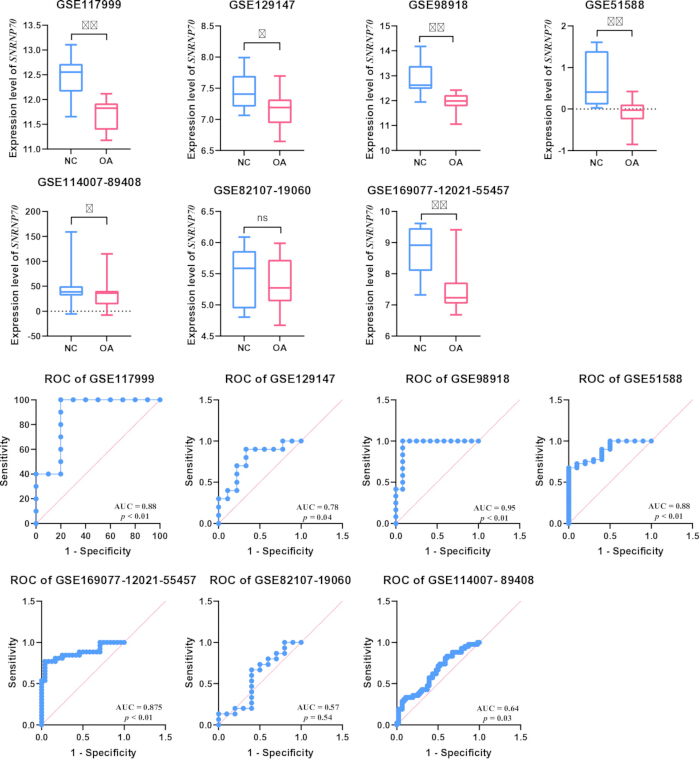
Şekil 1: Yedi çalışma için öğrencilerin t-testi ve ROC eğrisi. Sonuçlar, GSE117999, GSE129147, GSE98918, GSE51558, GSE114007-89408 ve GSE169077-12021-55457 (s< 0.05) bölgelerinde OA dokularında SNRNP70 ekspresyonunun, NC dokulara göre daha düşük olduğunu ve ROC AUC'nin yüksek uygulanabilirlik gösterdiğini gösterdi. p < 0.05 (*), p < 0.01(**). Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
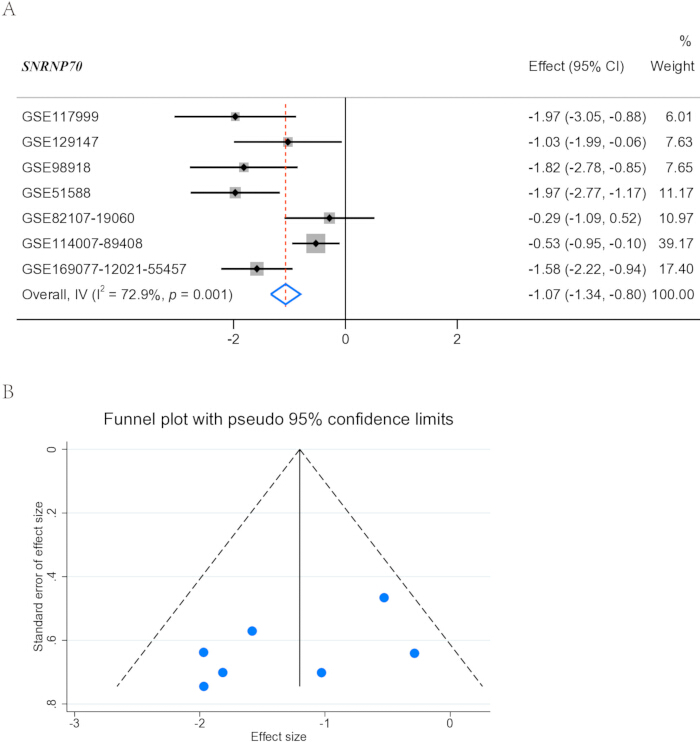
Şekil 2: Yedi veri seti için meta-analiz. (A) Sonuçlar I2 = %72,9, p = 0,001 ve genel SMD'nin -1,07 olduğunu gösterdi. (B) Huni diyagramı, meta-analizde yayın yanlılığı açısından değerlendirildi. Temelde simetrik olduğu tespit edildi. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
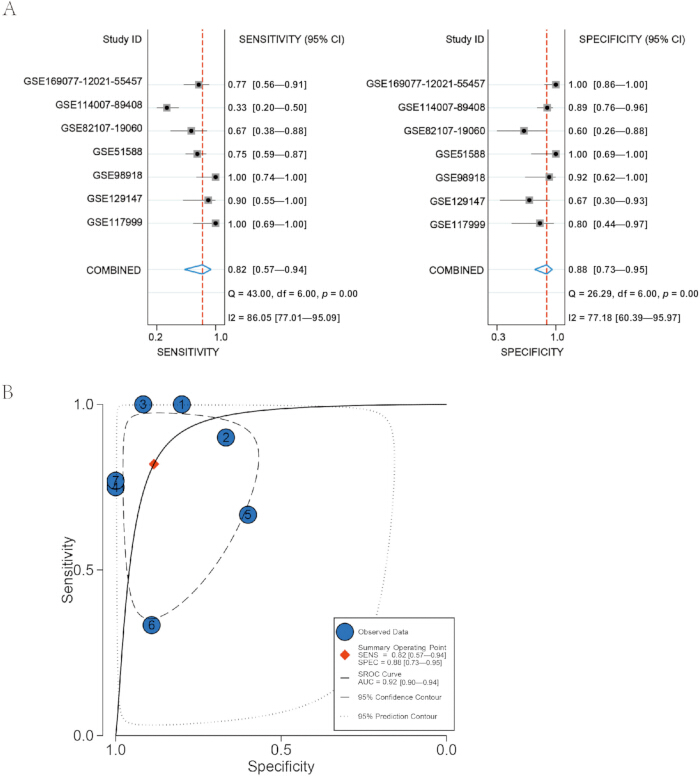
Şekil 3: SNRNP70'ın tanısal performansı. (A) Q-testi, hem hassasiyetin hem de özbaşdaklığın p-< 0,05 olduğunu, I2 değerlerinin sırasıyla %86,05 ve %77,18 olduğunu ortaya koydu; bu da önemli heterojenliği gösteriyor. Çalışma, 0.82 hassasiyet ve 0.88 spesifiklik bildirerek dikkat çekici performansını vurguladı. (B) sROC'nin AUC'si 0.92 olup, araştırmaya yüksek bir güven seviyesini gösteriyor. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
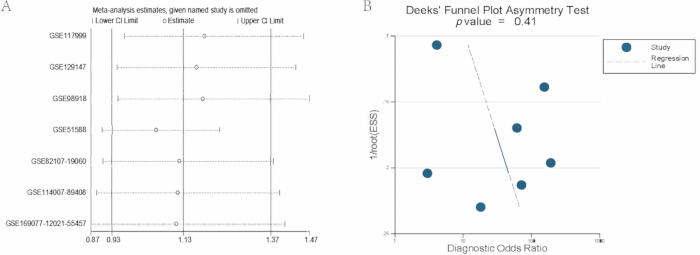
Şekil 4: Etki analizi ve Deek'in Huni Çizimesi. (A) Etki analizi, herhangi bir bireysel çalışmanın hariç tutulmasının genel sonuçları belirgin şekilde etkilemediğini gösterdi. (B) Yedi çalışmada tüm sonuçlar anlamlı bir yanlılık göstermedi (p = 0.41). Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
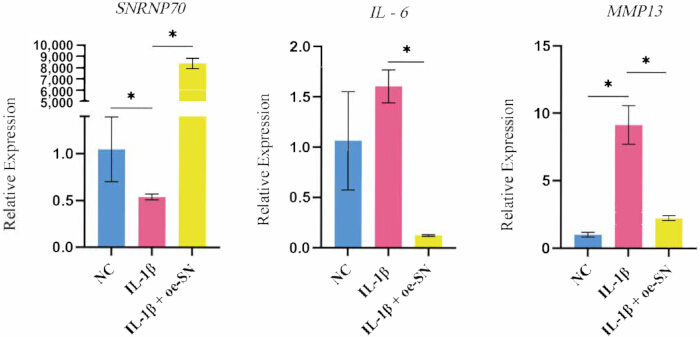
Şekil 5: qRT-PCR sonuçları, IL-1β tedavisi sonrası kondrositlerde SNRNP70 ekspresyonda anlamlı bir azalma göstermektedir. Oe-SN grubunda, IL-6 ve MMP13 inflamatuar belirteçlerinin IL-1 grubuna kıyasla ifade seviyelerinde belirgin bir azalma görüldü; bu da SNRNP70 aşırı ekspresyonunun IL-1β ile tedavi edilen kondrositlerdeki inflamatuar belirteçleri tersine çevirebileceğini göstermektedir. Veriler, n = 3 bağımsız biyolojik kopyadan ortalama ± SD olarak sunulur. p-değerler < 0.05 (*), p-değerler < 0.01(**). Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
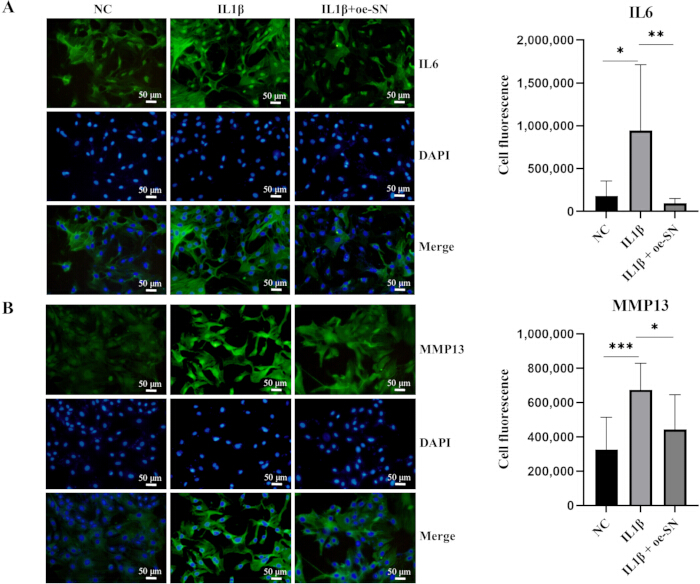
Şekil 6: IL-1β tedavisi sonrası IL-1β ile işlenmiş kondrositlerin IF analizi, floresans yoğunluğunu göstermektedir. (A) IL-6'nın floresans yoğunluğu ve (B) MMP13 önemli ölçüde arttı. Ancak, SNRNP70 aşırı ekspresyonu, inflamatuar belirteçler IL-6 ve MMP13'ün floresan yoğunluğunda belirgin bir azalmaya yol açtı. Bu sonuçlar, SNRNP70 aşırı ekspresyonun IL-1β ile tedavi edilen kondrositlerdeki iltihabı hafifletebileceğini göstermektedir. Tüm mikroskobik görüntüler 10x büyütmede çekildi. Veriler, n = 3 bağımsız biyolojik kopyadan ortalama ± SD olarak sunulur. p-değerler < 0.05 (*), p-değerler < 0.01(**). Ölçek çubuğu = 50 μm. Bu figürün daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
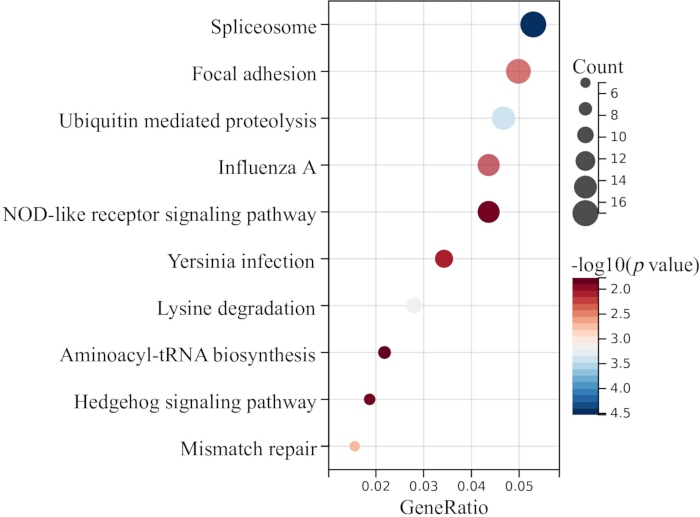
Şekil 7: Osteoartrit veri setlerinde SNRNP70 ilişkili genlerin korelasyon tabanlı KEGG zenginleştirme analizi. clusterProfiler (Benjamini–Hochberg düzeltmesi) tarafından tanımlanan ilk 10 zenginleştirilmiş yol. Balon büyüklüğü = gen sayısı; renk = anlam (-log10(p değeri)). Fokal yapışma yolu (vurgulanmış), OA'da kondrosit yapışması, mekanotransduksiyon ve ECM yeniden modellenmesini aracılık eder. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
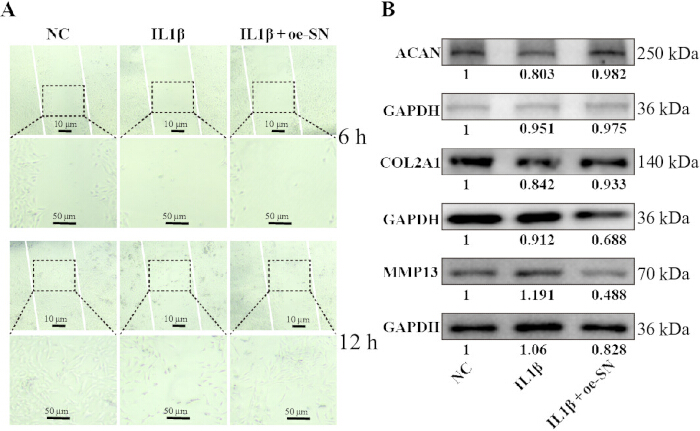
Şekil 8: SNRNP70 aşırı ekspresyon, IL-1β ile işlenmiş kondrositlerde ECM onarımını yeniden sağlar. (A) Kontrolde tırmalama yara kapanışı, IL-1β ile tedavi edilmiş ve IL-1β ile SNRNP70 aşırı ekspresyon kondrositlerinin görüntüleri. (B) Anahtar kıkırdak matrisi ve katabolik proteinlerin temsil Western lekeleri. Zarlar ACAN, COL2A1 ve MMP13 için prodak yapıldı. GAPDH, bir yükleme kontrolü olarak gösterilir. Büyütmeler şunlardır: NC, IL-1β ve IL-1β+oe-SN grupları: 4x büyütmede: ölçek çubuğu = 10 μm. 10x büyütmede: ölçek çubuğu = 50 μm. Bu figürün daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil 1: Yara kapanışının nicel analizi ve Western blot densitometrisi. (A) NC, IL-1β ve IL-1β + oe-SNRNP70 gruplarından primer kondrositlerde çizik-sarma kapanışının nicelendirilmesi. (B) ACAN, COL2A1 ve MMP13 batı leke bantlarının densitometrik nicelenmesi. Bant yoğunlukları ImageJ kullanılarak nicele edilmiş ve GAPDH olarak normalleştirilmiştir. Veriler, n = 3 bağımsız biyolojik kopyadan ortalama ± SD olarak sunulur. *p < 0.05, **p < 0.01. Bu dosyayı indirmek için lütfen buraya tıklayın.
| Hedef Gen | İleri primer dizisi | İleri primer dizisi |
| GAPDH | 5'-TCTCTGCTCCTCCCTCTGTTCT-3' | 5'-ATCCGTTCACACCGACCTTC-3' |
| SNRNP70 | 5'-GAGACATGCACTCCACCACG-3' | 5'-TGCGGTGCTGTGATCTTACC-3' |
| IL6 | 5'-ACAAGTCCGGAGAGGAGACT-3' | 5'-ACAGTGCATCATCGTTC-3' |
| MMP13 | 5'-GGACAAAGACTATCCCCGCC-3' | 5'-GGCATGACTCTCACAATGCG-3' |
Tablo 1: Hedef genler için primerler. qRT-PCR'de kullanılan GAPDH, SNRNP70, IL6 ve MMP13 için ileri ve geri primer dizileri, hepsi 5′ > 3′ yönümünde gösterilmiştir. GAPDH ise iç kontrol idi.
| Çalışma Birimi | Platform | NC (n) | OA (n) | Dokular |
| GSE114007 | GPL11154, GPL18573 | 18 | 20 | Kıkırdaklar |
| GSE117999 | GPL20844 | 10 | 10 | Kıkırdaklar |
| GSE129147 | GPL15207 | 9 | 10 | Kıkırdaklar |
| GSE169077 | GPL96 | 5 | 6 | Kıkırdaklar |
| GSE12021 | GPL96 | 13 | 20 | Sinovyumlar |
| GSE55457 | GPL96 | 10 | 10 | Sinovyumlar |
| GSE89408 | GPL11154 | 28 | 22 | Sinovyumlar |
| GSE82107 | GPL570 | 7 | 10 | Sinovyumlar |
| GSE19060 | GPL570 | 3 | 5 | Menisküs |
| GSE98918 | GPL20844 | 12 | 12 | Menisküs |
| GSE51588 | GPL13497 | 10 | 40 | Subkondral kemik |
Tablo 2: Bu çalışmadaki veri setleri GEO veritabanından alınmıştır. Dahil etme kriterlerini karşılayan 11 kamuya açık GEO veri setinin özeti. Her veri seti için erişim kimliği, platform ve normal kontrol (NC) ile osteoartrit (OA) örneklerinin sayısı ile doku tipi birlikte sunulur. n = örnek sayısı.
Tartışma
Mevcut çalışmalar, SNRNP70 OA'nın patogenezinde koruyucu bir gen olarak işlev görebileceğini göstermektedir; çok yönlü bir eklem hastalığı olan ve önemli bir küresel sağlık sorunuoluşturan 29,30. Bu çalışma, OA'da SNRNP70'nin rolünü ilk kez raporlamaktadır. Bu çalışmada, OA dokularında SNRNP70 ekspresyonunun önemli ölçüde aşağı regulasyonu gösterdik; bu GEO verilerinin analiziyle kanıtlandı (genel SMD = -1.07, %95 GA: -1.34, -0.80; Şekil 2). Önemli olarak, bu bulgu daha sonra IL-1β ile tedavi edilmiş kondrositlerde doğrulandı. Ayrıca, bu çalışma IL-1β ile tedavi edilen kondrositlerin inflamatuar yanıtındaki SNRNP70 rolünü araştırmıştır. OA ile ilişkili koruyucu bir gen olarak SNRNP70, IL-1 ve MMP13'ün ifadesini bastırarak OA'nın ilerlemesini engelleme yeteneği göstermiştir. Bugüne kadar, bu çalışma OA ve NC dokuları arasında SNRNP70 ifade seviyelerinde belirgin bir fark bildiren ilk deneysel çalışmadır ve bu da OA patogenezinde SNRNP70 rolünün olabileceğini öne sürmektedir. Bu ilgi çekici gözlem, OA'da SNRNP70 olası tanısal sonuçları düşünmemizi sağlar.
Birden fazla RNA-dili veri seti ve dizisini içeren meta-analiz, SNRNP70'nin potansiyel tanısal önemine dair kanıtlar sağladı. -1.07 SMD, OA dokularında SNRNP70 tutarlı olarak aşağı regülasyonunu vurgulayarak tanısal bir aday olarak fayda olasılığını artırdı. ROC eğrisi analizi bu potansiyeli daha da vurguladı; 0,92 AUC ile güçlü ayrımcı gücün göstergesi oldu. Ayrıca, birleşik duyarlılık ve özgüllük değerleri, SNRNP70 daha erken ve daha doğru OA teşhisi yapılmasını mümkün kılabileceği fikrini destekledi. Tanı sözü vaadinin ötesinde, SNRNP70 OA yönetimi bağlamında ilgi çekici bir aday olmaya devam ediyor. OA'nın patogenezi, mekanik aşırı yüklenme, yaşlanma, genetik yatkınlık ve iltihaplanma gibi çok faktörlü birsüreçtir. Bu faktörler arasında, iltihap OA ilerlemesinin temel itici güçlerinden biri olarak giderek daha fazla tanınmıştır33,34. Bu durum, kıkırdak bozulması, sinovial iltihab ve değişen eklem homeostazı gibi bir dizi olay zincirini yönetir.
Bu çalışma, SNRNP70'nin spliceozom bileşeni olarak rolü nedeniyle anti-enflamatuarpotansiyelini inceledi (35,36). In vitro modeli kullanılarak, kondrositler OA eklemlerindeki inflamatuar mikroortamı taklit etmek için rekombinant sıçan IL-1β ile tedavi edildi. Bu bulgular, SNRNP70 IL-1β ile uyarlanan kondrositlerde iltihabın modülasyonunda rol oynayabileceğini göstermektedir. IF testleri, SNRNP70'ın anti-inflamatuar özellikleri için ek destek sağladı. IL-1β ile tedavi edilen kondrositler, oe-SN tarafından zayıflatılan inflamatuar proteinlerin artan ekspresyonu göstermiştir. SNRNP70 tarafından inflamatuar protein ifadesinin bu modülasyonu, OA patogenezi ile ilişkili inflamatuar zincirleme ile olası bir bağlantıyı ortaya koymaktadır.
Bu çalışma, OA'da SNRNP70 tanısal ve terapötik potansiyeline dair gözlemsel kanıtlar sunarken, etkilerinin altında yatan kesin mekanizmalar hâlâ ilgi ocağı37 olarak kalır. SNRNP70, gen ifadesinin düzenlenmesinde temel bir süreç olan RNA splicing'inde yer alan spliceozomun kritik bir bileşenidir. RNA splicing, mRNA moleküllerinin kodlamayan bölgelerini (intronları) çıkarıp kodlayan bölgeleri (ekzonları) birleştirerek gen ifadesinde kritik bir rol oynar ve nihayetindeproteom 38,39,40'ı şekillendirir. RNA splicing'deki SNRNP70 dahil olmanın OA patogenezi ile ilişkili genlerin ifadesini etkileyebileceği makul bir durumdur. OA etkilenen dokularda SNRNP70 tarafından düzenlenen spesifik RNA hedefleri ve splicing olayları henüz açıklanmamıştır. Bu mekanizmaların anlaşılması, OA'nın moleküler temelleri ve aday hedefler hakkında daha ileri araştırmalar için değerli bilgiler sunabilir. Ayrıca, gelecekteki araştırmalar, SNRNP70 arasında OA patogenezinde rol oynayan diğer moleküllerle etkileşimini araştırmalıdır. İltihaplanma, kıkırdak bozulması ve eklem dokusu yeniden şekillendirilmesiyle ilgili sinyal yolları ile çapraz konuşmasını incelemek, çok yönlü etkilerini daha kapsamlı bir şekilde anlama sağlayabilir.
Bu çalışmanın dikkate alınması gereken bazı sınırlamaları vardır. Meta-analiz çok sayıda veri setini içerse de, çalışma tasarımı, hasta demografisi ve veri işlemedeki farklılıklar heterojenlik getirebilir. Ayrıca, dahil edilen veri setleri doku kökeninde (örneğin, kıkırdak ile sinovyum arasında) ve işlem platformlarında değişiklik gösterdi; bu da gözlemlenen çalışmalar arası heterojenliği kısmen açıklayabilir (I2 = %73,3). Ayrıca, bu bütünleştirici analiz kamuya açık insan veri setlerine dayanıyordu; fonksiyonel deneyler ise neonatal farelerden izole edilmiş kondrositleri kullandı. Bu türler arası fark, in vitro bulguların insan OA patofizyolojisine doğrudan ekstrapolasyon yapılabileceğini sınırlar. Bir diğer uyarı ise, sadece erken inflamatuar yanıtı yakalayan ve insanlarda OA'nın kronik, ilerleyici ve çok faktörlü doğasını tam olarak yansıtmayan akut IL-1β uyarlama modeline güvenmektir. Ayrıca, fonksiyonel deneyler fonksiyon kazanımı yaklaşımlarıyla (SNRNP70 aşırı ifade) sınırlıydı; Fonksiyon kaybı deneyleri (örneğin, SNRNP70 yere inme) yapılmamıştır, bu da mevcut çalışmanın bir sınırlamasıdır. Son olarak, korelasyon analizleri odak yapışma yolunda SNRNP70 ilişkili olsa da, FAK splicing olayları doğrudan incelenmedi ve odak yapışma sinyalinin SNRNP70 sonrasında değiştirildiğine dair deneysel kanıtlar sunulmadı. Bu nedenle, bu bulguların sağlamlığını güçlendirmek için daha büyük hasta kohortlarında ve hayvan modellerinde doğrulama gerekmektedir. Ayrıca, in vitro deneylerde hücre kültürü modeli kullanıldı; bu model, OA eklemlerinin karmaşık in vivo mikro ortamını tam olarak yansıtamayabilir. Gelecekteki çalışmalar, OA'nın hayvan modellerinde SNRNP70'nin etkilerini inceleyerek terapötik potansiyelini daha fizyolojik olarak ilgili bir bağlamda değerlendirmelidir.
Açıklamalar
Yazarların çıkar çatışması yoktur.
Teşekkürler
Bu araştırma, Guangxi Key Research, Çin (GuiKe AB22035014), Guangxi Tıp Üniversitesi'nin İlk Bağlı Hastanesi (YYZS2022003) Özel Karakteristik İnovasyon Fonu Ekibi ve 2026 Hainan Eyaleti Sağlık Bilimi ve Teknoloji İnovasyon Ortak Projesi (WSJK2026QN087) tarafından finanse edilmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Anti-aggrecan (ACAN) antibody | Abcam | ab36861 | Birincil antikor, seyreltme 1:1000 |
| Anti-collagen tip II alfa 1 (COL2A1) antibody | Abcam | ab34712 | Birincil antikor, seyreltme 1:1000 |
| Anti-IL6 antikoru | Proteintech | 21865-1-AP | Hücre kültürü için antibiyotikler |
| Anti-MMP13 antikoru | Proteintech | 18165-1-AP | Birincil antikor, seyreltme 1:1000 |
| BCA protein analiz kiti | Thermo Fisher Scientific | 23225 | Toplam protein konsantrasyon tayini |
| CFX96 Gerçek Zamanlı PCR Algılama Sistemi | Bio-Rad | 1855195 | Gerçek zamanlı PCR algılama sistemi |
| ChemiDoc XRS+ görüntüleme sistemi | Bio-Rad | 1708265 | Kimilüminesans görüntüleme sistemi |
| Kollajenaz tip II | Sigma-Aldrich | C6885 | Kıkırdak dokusu sindirimi, 2 mg/mL |
| DAPI | Thermo Fisher Scientific | 62248 | Nükleer karşı boyama |
| Dulbecco’nun Değiştirilmiş Kartal Ortamı/F12 | Gibco | 11320033 | Taban hücre kültürü ortamı |
| ECL reaktifi | Thermo Fisher Scientific | 34580 | Gelişmiş kimilüminesans reaktifi |
| Fetal sığır serumu | Gibco | 10082147 | Kültüre takviye olarak %10 konsantrasyon |
| Floresan mikroskopu | Olympus | BX53 | İmmünofloresan görüntüleme (20x büyütme) |
| GEO veritabanı | NCBI | N/A | Kamu RNA-seq ve mikrodizis veri setleri |
| GraphPad Prism 8.0 | GraphPad | N/A | ROC eğrisi analizi |
| HRP-konjuge ikincil antikorlar | Santa Cruz Biotechnology | sc-516102 | İkincil antikor |
| ImageJ yazılımı | NIH | N/A | Densitometrik analiz yazılımı |
| LipoFiter 3.0 | Hanbio | HB-TF3001 | Transfeksiyon reaktifi |
| NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | RNA saflık ve konsantrasyon ölçümü (A260/280 oranı) |
| oe-SNRNP70 | Hanbio | HB-OV5101 | Aşırı ekspresyon plazmidi |
| Penisilin | Thermo Fisher Scientific | 15140122 | Hücre kültürü için antibiyotik |
| Primer-BLAST | NCBI | N/A | Gen-spesifik primer tasarımı |
| Primerler (sentezlenmiş) | Sangon Biotech | N/A | PCR primerlerinin ticari sentezi |
| proteaz ve fosfataz inhibitör kokteyli | Roche | 4693159001 | Proteaz ve fosfataz inhibitörlerinin kokteyli |
| PVDF membran | Millipore | IPVH00010 | Protein transfer membranı |
| ReverTra Ace qPCR RT Kit | TOYOBO | FSQ-101 | Birinci iplik cDNA sentezi |
| RIPA tamponu | Beyotime | P0013B | Proteaz ve fosfataz inhibitörleri içeren hücre lizis tamponu |
| Rekombinant sıçan interlökin-1β | PeproTech | 400-01B | Kondrositlerde inflamatuar yanıtı indükle |
| Sangerbox platformu | http://vip.sangerbox.com/ | N/A | ROC eğrisi analizi |
| Simple Western Otomatik Western Blot Sistemi | ProteinSimple Jess | Jess (model 004-600) | Otomatik protein ekspresyon tespit sistemi |
| Stata 14.0 | Stata | N/A | Meta analiz |
| Streptomisin | Thermo Fisher Scientific | Hücre kültürü için antibiyotik | |
| SYBR® Premix Ex Taq® Kit | Takara | QPK-201 | Gerçek zamanlı kantitatif PCR |
| The RNAfast200 kit | Fastagen Biotech | 220010-100 | Kondrositlerden toplam RNA ekstraksiyonu |
| Trypsin-EDTA | Gibco | 25200072 | Hücre ayrışması, %0,25 trypsin-EDTA |
Kaynaklar
- David, J. H., Lyn, M., Mabel, C. Osteoarthritis in 2020 and beyond: a Lancet Commission. Lancet. 396 (10264), 1711-1712 (2020).
- Leifer, V. P., Katz, J. N., Losina, E. The burden of OA-health services and economics. Osteoarthritis Cartilage. 30 (1), 10-16 (2022).
- Long, H., et al. Prevalence Trends of Site-Specific Osteoarthritis From 1990 to 2019: Findings From the Global Burden of Disease Study 2019. Arthritis Rheumatol. 74 (7), 1172-1183 (2022).
- Loeser, R., Collins, J., Diekman, B. Aging and the pathogenesis of osteoarthritis. Nat Rev Rheumatol. 12 (7), 412-420 (2016).
- Tang, Y., Wang, Z., Cao, J., Tu, Y. Bone–brain crosstalk in osteoarthritis: pathophysiology and interventions. Trends Mol Med. 31 (3), 281-295 (2025).
- Chen, M., et al. Remodeling the Proinflammatory Microenvironment in Osteoarthritis through Interleukin-1 Beta Tailored Exosome Cargo for Inflammatory Regulation and Cartilage Regeneration. ACS Nano. 19 (4), 4924-4941 (2025).
- Murphy, M., et al. Articular cartilage regeneration by activated skeletal stem cells. Nat Med. 26 (10), 1583-1592 (2020).
- Zhang, H., et al. Mechanical overloading promotes chondrocyte senescence and osteoarthritis development through downregulating FBXW7. Ann Rheum Dis. 81 (5), 676-686 (2022).
- MacMullan, P., McCarthy, G. The meniscus, calcification and osteoarthritis: a pathologic team. Arthritis Res Ther. 12 (3), 116(2010).
- Jarraya, M., et al. Meniscus morphology: Does tear type matter? A narrative review with focus on relevance for osteoarthritis research. Semin Arthritis Rheum. 46 (5), 552-561 (2017).
- Fu, X., et al. Erythropoietin enhances meniscal regeneration and prevents osteoarthritis formation in mice. Am J Transl Res. 12 (10), 6464-6477 (2020).
- Li, C., et al. Integrated Analysis of Transcriptome Changes in Osteoarthritis: Gene Expression, Pathways, and Alternative Splicing. Cartilage. 14 (2), 235-246 (2023).
- Liu, H., et al. Regulation of Chondrocyte Metabolism and Osteoarthritis Development by Sirt5 Through Protein Lysine Malonylation. Arthritis Rheumatol. 77 (9), 1216-1227 (2025).
- Zhou, H., et al. FTO-mediated SMAD2 m6A modification protects cartilage against Osteoarthritis. Exp Mol Med. 56 (10), 2283-2295 (2024).
- Li, Y., et al. A Wnt-induced lncRNA-DGCR5 splicing switch drives tumor-promoting inflammation in esophageal squamous cell carcinoma. Cell Rep. 42 (6), 112542(2023).
- Mann, M., et al. Bromodomain-containing Protein 4 regulates innate inflammation via modulation of alternative splicing. Front Immunol. 14, 1212770(2023).
- Zhang, L., et al. RNF213 loss of function reshapes vascular transcriptome and spliceosome leading to disrupted angiogenesis and aggravated vascular inflammatory responses. J Cereb Blood Flow Metab. 42 (11), 2107-2122 (2022).
- Yan, C., Wan, R., Shi, Y. Molecular Mechanisms of pre-mRNA Splicing through Structural Biology of the Spliceosome. Cold Spring Harb Perspect Biol. 11 (1), (2019).
- Borisek, J., et al. Atomic-Level Mechanism of Pre-mRNA Splicing in Health and Disease. Acc Chem Res. 54 (1), 144-154 (2020).
- Pala, D., et al. Focal adhesion kinase/Src suppresses early chondrogenesis: central role of CCN2. J Biol Chem. 283 (14), 9239-9247 (2008).
- Kim, Y. H., Lee, J. W. Targeting of focal adhesion kinase by small interfering RNAs reduces chondrocyte redifferentiation capacity in alginate bead culture with type II collagen. J Cell Physiol. 218 (3), 623-630 (2009).
- Byun, S., et al. Response splicing quantitative trait loci in primary human chondrocytes identify putative osteoarthritis risk genes. Nat Commun. 16 (1), 1-17 (2025).
- Yang, B., Li, X., Su, Y. Single-cell sequencing and machine learning-based prediction of spliceosome-associated factor 2 may represent potential targets for osteoarthritis. Osteoarthritis Cartilage Open. 8 (2), (2026).
- Will, C., Lührmann, R. Spliceosome structure and function. Cold Spring Harb Perspect Biol. 3 (7), (2011).
- Nakaya, T. Dissection of FUS domains involved in regulation of SnRNP70 gene expression. FEBS Lett. 594 (21), 3518-3529 (2020).
- Zhou, C., et al. Microenvironmental stiffness mediates cytoskeleton re-organization in chondrocytes through laminin-FAK mechanotransduction. Int J Oral Sci. 14 (1), 1-13 (2022).
- Shin, H., et al. Focal Adhesion Assembly Induces Phenotypic Changes and Dedifferentiation in Chondrocytes. J Cell Physiol. 231 (8), 1822-1831 (2016).
- Li, G., et al. Zyxin-involved actin regulation is essential in the maintenance of vinculin focal adhesion and chondrocyte differentiation status. Cell Prolif. 52 (1), 1-14 (2018).
- Bowden, J., et al. Core and adjunctive interventions for osteoarthritis: efficacy and models for implementation. Nat Rev Rheumatol. 16 (8), 434-447 (2020).
- Chen, S., et al. Epidemiological trends and characteristics of osteoarthritis in China during 1990–2021. J Orthop Translat. 51, 218-226 (2025).
- Luo, P., et al. The role of cells and signal pathways in subchondral bone in osteoarthritis. Bone Joint Res. 12 (9), 536-545 (2023).
- Ming, L., Nafiza, H., Jingyi, H., Guangju, Z. Osteoarthritis year in review 2023: metabolite and protein biomarkers. Osteoarthritis Cartilage. 31 (11), 1437-1453 (2023).
- Zeyu, H., Ketao, W., Shenglong, D., Mingzhu, Z. Cross-talk of inflammation and cellular senescence: a new insight into the occurrence and progression of osteoarthritis. Bone Res. 12 (1), 1-17 (2024).
- Ma, J., et al. GYY4137-induced p65 sulfhydration protects synovial macrophages against pyroptosis by improving mitochondrial function in osteoarthritis development. J Adv Res. 71, 173-188 (2025).
- Kiebler, M., Ninkovic, J. RNA biology: Alternative splicing hits synaptic function and behavior. Curr Biol. 32 (23), R1314-R1316 (2022).
- Nikolaou, N., et al. Cytoplasmic pool of U1 spliceosome protein SNRNP70 shapes the axonal transcriptome and regulates motor connectivity. Curr Biol. 32 (23), 5099-5115.e8 (2022).
- Hu, Z., et al. U1 snRNP proteins promote proximal alternative polyadenylation sites by directly interacting with 3' end processing core factors. J Mol Cell Biol. 14 (8), (2022).
- Jobbins, A., et al. Pre-RNA splicing in metabolic homeostasis and liver disease. Trends Endocrinol Metab. , (2023).
- Zheng, Y., Zhong, G., He, C., Li, M. Targeted splicing therapy: new strategies for colorectal cancer. Front Oncol. 13, 1222932(2023).
- Zhang, Y., Hu, W., Li, H. RNA modification-mediated translational control in immune cells. RNA Biol. 20 (1), 603-613 (2023).