Bu protokol, miyozin motor aktivitesinin, membran benzeri bir arayüzde dallanmış aktin montajını ve ağ mimarisini nasıl etkilediğini nicel olarak incelemek için ayarlanabilir bir aktin kuyruklu yıldız-boncuk hareketlilik testi tanımlamaktadır.
Yöntem makalesi
Boncuk Tabanlı Aktin Kuyruk Motilitesi Deneyinde Miyozin-I Aracılı Dallanmış Aktin Düzenlenmesinin Yeniden Oluşturulması
Bu makalede
Özet
Özet
Aktinle ilişkili protein 2/3 (Arp2/3) kompleksi aracılığıyla gerçekleşen dallanmış aktin polimerizasyonu; hücre göçü, endositoz ve fagositoz dahil olmak üzere çeşitli hücresel süreçler için temel itme kuvvetlerini sağlar. Hücrenin ön kenarında dallanmış aktin ağlarıyla sıklıkla aynı bölgede bulunan Miyozin-I motorlarının da bu süreçlere katıldığı gösterilmiştir ve aktin ağı organizasyonunu ve mekanik çıktıyı düzenledikleri düşünülmektedir. Ancak, Miyozin-I'in dallanmış aktin montajını ve kuvvet üretimini modüle etmek için Arp2/3 kompleksi ile etkileşime girdiği moleküler mekanizmalar büyük ölçüde bilinmemektedir. Burada, hücre ön kenarındaki Miyozin-I, aktin ve Arp2/3 kompleksi arasındaki etkileşimi mikron boyutundaki boncukların yüzeyinde yeniden oluşturan, yüksek düzeyde ayarlanabilir bir in vitro aktin kuyruklu yıldız boncuk hareketliliği deneyi tanımlıyoruz. Bu yöntem, Miyozin-I'i boncuk yüzeylerinde nükleasyon destekleyici faktörlerle (NPF'ler) birlikte immobilize ederek, böylece membran benzeri bir aktin montaj arayüzü oluşturarak, iyi tanımlanmış aktin kuyruklu yıldız deneylerinden uyarlanmıştır. Deney; aktin ağı montajının, ağ yoğunluğunun, boncuk hareketliliğinin ve büyüme verimliliğinin görselleştirilmesine ve kantitatif analizine olanak tanır. Ayrıca, dallanmış aktin ağlarında Miyozin-I aracılı kuvvet artışına dair dolaylı, kalitatif veriler sağlar. Bu protokol; membran benzeri arayüzlerde Miyozin-I tarafından düzenlenen aktin montajını incelemek için tekrarlanabilir bir platform sunan boncuk fonksiyonelleştirme, reaksiyon kurulumu, floresan görüntüleme, kantitatif görüntü analizi ve sorun giderme stratejilerini içermektedir.
Giriş
Aktinle ilişkili protein 2/3 (Arp2/3) kompleksi tarafından yönetilen dallanmış aktin polimerizasyonu; hücre hareketliliği, endositoz, fagositoz ve hücre adezyon komplekslerinin oluşumu dahil olmak üzere çeşitli hücresel süreçleri yönlendiren temel itici kuvvetleri oluşturur1,2,3,4,5,6. Göç eden hücrelerin ön kenarında, nükleasyonu teşvik eden faktörler (NPF'ler), plazma membranında Arp2/3 kompleksini aktive ederek membranı ileriye iten dendritik aktin ağı montajını başlatır. Miyozin-I motorları, membran arayüzlerinde bu dallanmış aktin ağları ile sıklıkla kolokalize olur ve aktin organizasyonunun düzenlenmesinde ve kuvvet üretiminin modüle edilmesinde rol oynadıkları belirtilmiştir7,8,9,10,11,12,13. Miyozin-I'nin aktine bağlı mekanik süreçlere katkıda bulunduğuna dair kanıtlar birikmesine rağmen, miyozin-I'nin ağ mimarisini ve mekanik çıktıyı modüle etmek için Arp2/3 aracılı dallanmış aktin montajı ile etkileşime girdiği moleküler mekanizmalar henüz yeterince anlaşılamamıştır.
Bu boşluğu gidermek için, myosin-I'i, mikron boyutundaki boncukların yüzeyinde myosin-I, aktin ve Arp2/3 kompleksi arasındaki etkileşimi yeniden oluşturmak amacıyla, iyi bilinen aktin kuyruk benzeri (comet-tail) boncuk hareketliliği sistemine14,15,16,17 entegre ettik. Bu yöntemin genel amacı; myosin-aktin eşleşmesinin, membran benzeri bir arayüzde dallanmış aktin montajını, ağ mimarisini, simetri bozulmasını ve boncuk hareketliliğini nasıl etkilediğini kantitatif olarak incelemektir. Bu analizde, plazma membranındaki kolokalizasyonlarını taklit etmek için myosin-I ve NPF'ler mikro ölçekli boncukların üzerine birlikte kaplanmaktadır18. Polimerizasyonun başlamasıyla birlikte, yüzeye bağlı NPF'ler Arp2/3 bağımlı dallanmış aktin montajını stimüle ederek aktin kabuğu oluşumuna, simetri bozulmasına ve boncuk itkisini sağlayan polarize bir kuyruk gelişmesine yol açar14,19,20,21,22,23. Myosin yüzey yoğunluğunun sistematik olarak değiştirilmesiyle18 ve capping protein (CP) konsantrasyonu aracılığıyla aktin ağ yoğunluğunun modüle edilmesiyle15,19,24, bu yöntem; aktin montaj kinetiğinin, büyüme verimliliğinin, ağ mimarisinin ve boncuk hareketliliğinin kantitatif analizine olanak tanıyarak myosin-I bağımlı mekanik çıktı değişikliklerine ilişkin dolaylı veriler sağlar.
Bu analiz yöntemi, tamamlayıcı yaklaşımlara kıyasla belirgin avantajlar da sunmaktadır. Pyrene-aktin analizleri gibi dökme polimerizasyon analizleri ile karşılaştırıldığında, bu boncuk hareketliliği sistemi, dallanmış aktin montajının ve aktin polimerizasyonu kaynaklı boncuk hareketinin doğrudan görselleştirilmesine olanak tanır. Üst üste binen protein işlevlerinin ve karmaşık hücresel ortamların bireysel katkıları gölgeleyebildiği ve yorumlamayı zorlaştırabildiği hücresel çalışmaların aksine, bu analiz yöntemi; protein kompozisyonu, konsantrasyonu ve yüzey organizasyonu üzerinde hassas kontrol sağlayarak, myosin-I'in tanımlanmış biyokimyasal koşullar altında Arp2/3 aracılı aktin montajı ile nasıl etkileşime girdiğinin sistematik olarak incelenmesini mümkün kılar.
Bu yöntem, aktin ağ mimarisini ve mekanik çıktıyı düzenlemek için hücre iskeleti bileşenlerinin membran benzeri bir arayüzde nasıl koordine olduğunu incelemek için en uygunudur. Mevcut protokol myosin-I aracılı dallanmış aktin montajı için optimize edilmiş olsa da, modüler tasarımı gelecekte diğer membrana ilişkili myosin sınıflarını (örneğin, myosin VI, VII, X, XV ve XIX) ve/veya aktine bağlanan proteinleri (örneğin, forminler, vazodilatörle stimüle edilen fosfoprotein (VASP), kortaktin, koronin veya tropomyosin) incelemek için uyarlanabilir. Bu tür uyarlamalar; protein immobilizasyonunun, aktivitesinin ve yüzey yoğunluğunun doğrulanmasını gerektirecektir. Ek olarak, analiz pulse-chase etiketleme stratejilerine uygundur. Fotokonvertibl veya fotoaktive edilebilir aktinin veya etiketli Arp2/3 alt birimlerinin dahil edilmesi, büyüyen ağ içindeki filament döngüsü ve dal dissociate oranlarının ölçülmesini sağlayabilir25. Genel olarak bu analiz, membrana ilişkili motorlar, aktin filamentleri ve aktine bağlanan proteinler arasındaki moleküler etkileşimi incelemek ve ayrıca motorların ile aktine bağlanan proteinlerin membran benzeri arayüzlerde ağ yeniden şekillenmesini ve kuvvet üretimini nasıl düzenlediğini araştırmak için çok yönlü bir platform sunar14,15,26,27,28,29,30,31,32,33,34. Daha geniş kapsamda, aktif actomyosin ağlarındaki simetri kırılması, kendi kendine organizasyon, mekanokimyasal geri besleme ve diğer belirgin davranışlar gibi motor kaynaklı dengedışı dinamiklerin temelindeki fiziksel ilkeleri araştırmak için aktif madde fiziği ve malzeme mühendisliği ile potansiyel ilgisi olan minimal, ayarlanabilir bir aktif madde platformu olarak da hizmet eder18,19,20,21,22,23,35,36.
Protokol
Bu protokol, dallanmış aktin montajını ve ön uçtaki kuvvet üretimini modüle etmede myosin-I'in rolünü taklit etmek ve incelemek amacıyla, iyi bilinen aktin kuyruklu yıldız boncuk hareketlilik sistemine14,15,16,17 myosin-I eklenerek geliştirilmiştir. Bu çalışmanın amacı, deneyi tekrarlamak ve uyarlamak için gerekli olan deneysel ayrıntıları, analiz iş akışını, sorun giderme stratejilerini ve kısıtlamaları sağlayarak orijinal birincil araştırma makalesini (Xu et al.18) tamamlamaktır. Bu protokol, çoğu in vitro yeniden yapılandırma deneyinde yaygın olarak kullanılan sıcaklık olan 20°C–22°C'de37,38 optimum şekilde çalıştığı için tam uzunlukte biotinillenmiş Drosophila Myo1d kullanmaktadır. Miyozin biotinilleme ve saflaştırma prosedürlerinin ayrıntılı açıklamaları önceki çalışmalarda18,38,39,40 bulunabilir.
1. Tampon hazırlama
- Boncukların neutravidin ve NPF kaplaması için 10 mM 4-(2-hidroksietil)-1-piperazinetansülfonik asit (HEPES; pH 7.5), 100 mM KCl, 1 mM MgCl₂, 100 µM CaCl₂ ve 1 mM adenozin trifosfat (ATP) içeren X tamponunu hazırlayın.
- Boncukların miyozin kaplaması için 20 mM HEPES (pH 7.5), 100 mM KCl, 1 mM MgCl₂, 1 mM etilen glikol-bis(β-aminoetil eter)-N,N,N′,N′-tetraasetik asit (EGTA) ve 2 mM ATP içeren M tamponunu hazırlayın.
- X tamponu veya M tamponu hazırlamak için öncelikle oda sıcaklığında pH 7.5'e ayarlanmış bir HEPES stok çözeltisi hazırlayın. KCl, MgCl₂, CaCl₂ (X tamponu için) veya EGTA (M tamponu için) ekleyin, ardından ATP ekleyin ve son olarak tamponu çift distile su ile son hacme tamamlayın.
- Kullanmadan önce tamponu 0.22 µm'lik bir şırınga filtresinden süzün. Rutin boncuk kaplama deneyleri için gaz giderme işlemine gerek yoktur. Süzülmüş tamponu kullanana kadar buz üzerinde tutun.
NOT: Optimum sonuçlar için ATP veya ditiyotreitol (DTT) içeren tamponları her zaman taze hazırlayın. Taze hazırlanan X tamponunu ve M tamponunu buz üzerinde 3–4 güne kadar saklayın.
- Bloklama için çift distile su içinde 100 mg/mL sığır serum albümini (BSA) stok çözeltisi hazırlayın. Çözeltiyi 0.22 µm'lik bir şırınga filtresinden süzün, tüp başına 50 µL'lik alikotlar hazırlayın ve alikotları −80°C'de saklayın. Alikotları 3–6 ay içinde kullanın ve tekrarlanan dondurma-çözme döngülerinden kaçının.
- Boncuk saklama tamponlarını hazırlayın.
- Kontrol boncuğu saklama tamponunu, 100 mg/mL BSA stok çözeltisini X tamponu ile 100 kat seyrelterek X tamponunda 1 mg/mL BSA elde edecek şekilde hazırlayın.
- Miyozin boncuğu saklama tamponunu, 100 mg/mL BSA stok çözeltisini M tamponu ile 100 kat seyrelterek M tamponunda 1 mg/mL BSA elde edecek şekilde hazırlayın.
- 40 mM HEPES (pH 7.5), 200 mM KCl, 2 mM MgCl₂, 2 mM EGTA ve %0.4 metilselüloz (viskozite: 1500 cP) içeren 2× motilite tamponu hazırlayın. Tamponu 4°C'de 1 aya kadar saklayın. Homojenliği sağlamak ve hava kabarcığı oluşumunu önlemek için kullanmadan önce nazikçe karıştırın.
DİKKAT: Tüm kimyasalları kurumsal laboratuvar güvenlik prosedürlerine uygun olarak kullanın. Tampon hazırlama sırasında uygun kişisel koruyucu ekipman kullanın.
2. Boncuk hazırlığı
NOT: Karboksilat polistiren boncukları (2.0-µm çapında), daha önce yayınlanmış protokolleri14,15,16,17 ve miyozin kaplama için yapılan modifikasyonları18 takip ederek NPF'ler ve neutravidin ile kaplayın. NPF (GST-VCA) olarak, insan nöronal Wiskott–Aldrich sendromu proteininden (N-WASP) türetilmiş glutathione S-transferase (GST)-etiketli WCA domainini kullanın. Aşağıdaki protokol, 50 µL boncuk süspansiyonu hazırlamak için tasarlanmıştır ve gereksinimlere göre 100–200 µL'ye ölçeklendirilebilir.
- Neutravidin ve NPF kaplama
- 5 µL GST-VCA (1 mg/mL), istenen konsantrasyonda 10 µL neutravidin ve 35 µL X tamponu karıştırarak 50 µL'lik bir NPF ve neutravidin kaplama karışımı hazırlayın. Kabarcık oluşumundan kaçınarak pipetle 5–10 kez yukarı-aşağı çekip iterek nazikçe karıştırın.
NOT: Farklı miyozin-NPF kaplama oranları elde etmek için aşağıdaki referans neutravidin konsantrasyonlarını kullanın18: 0,28:1 miyozin:NPF molar oranı için 8,3 µM (0,5 mg/mL); 0,35:1 miyozin:NPF molar oranı için 16,7 µM (1 mg/mL); 0,43:1 miyozin:NPF molar oranı için 33,3 µM (2 mg/mL) ve 0,80:1 miyozin:NPF molar oranı için 83,3 µM (5 mg/mL). Neutravidin konsantrasyonunu, istenen miyozin-NPF kaplama oranına göre seçin. Standart kuyruklu yıldız (comet-tail) hareketlilik deneyleri için, Arp2/3 bağımlı aktin montajı için yeterli NPF yoğunluğunu korurken güçlü miyozin kaplaması sağlayan 0,43:1 miyozin-NPF oranını kullanın. Daha düşük miyozin yüzey yoğunluklarını değerlendirmek için daha düşük oranlar (0,28:1 veya 0,35:1) kullanılabilirken, daha yüksek miyozin yüklemesini incelemek için 0,80:1 oranı kullanılabilir. Neutravidin konsantrasyonunun artırılması hem miyozin alımını hem de etkili NPF yüzey yoğunluğunu değiştirebileceği için, deneyi yeni protein preparatlarına veya deneysel koşullara uyarlarken kaplama oranını sodyum dodesil sülfat–poliakrilamid jel elektroforezi (SDS-PAGE) (Bkz. Bölüm 2.3) veya floresan tabanlı yüzey yoğunluğu ölçümleri ile doğrulayın. - Bir mikrocentrifüj tüpüne 5 µL boncuk süspansiyonu aktarın. Boncukları, en az beş kez pipetleyerek 10 µL X tamponu ile yıkayın. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün. Tüpü eğerek ve boncuk peletinin karşı tarafındaki kenardan aspire ederek süpernatantı dikkatlice uzaklaştırın.
- Yıkanmış boncukları 50 µL kaplama karışımı içinde yeniden süspanse edin. Süspansiyonu nazikçe pipetleyerek karıştırın ve inkübasyon sırasında karışımı kolaylaştırmak için süspansiyonda küçük bir hava kabarcığı bırakın. Boncukları bir masaüstü rotatörde 20 rpm hızda, 2 saat boyunca 4°C'de inkübe edin. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün ve fazla neutravidin ile GST-VCA içeren süpernatantı dikkatlice uzaklaştırın.
- Kaplanmış boncukları, 100 mg/mL BSA stok çözeltisinin X tamponunda seyreltilmesiyle hazırlanan 200–400 µL 10 mg/mL BSA içinde yeniden süspanse edin. Boncuk yüzeyindeki boş bağlanma bölgelerini bloke etmek için süspansiyonu buz üzerinde 30 dakika inkübe edin. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün ve süpernatantı dikkatlice uzaklaştırın.
- Boncukları X tamponunda hazırlanan 50 µL 1 mg/mL BSA içinde yeniden süspanse edin. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün, süpernatantı dikkatlice uzaklaştırın ve yıkama işlemini iki kez tekrarlayın.
NOT: Kaplama reaksiyonundan sonra, kabarcık oluşumundan kaçınarak pipetle 5–7 kez yukarı-aşağı çekip iterek boncukları nazikce yeniden süspanse edin. Boncuk süspansiyonu, görünür agregatlar veya topaklar olmadan iyi dağılmış görünmelidir. Yaygın agregasyon, kötü resüspansiyon veya belirgin boncuk kaybı gösteren boncuk preparatlarını kullanmayın; çünkü bu durumlar düzensiz kaplamaya ve azalmış deney tekrarlanabilirliğine neden olabilir. - Kaplanmış boncukları X tamponunda hazırlanan 1 mg/mL BSA içinde buz üzerinde saklayın. Kaplanmış boncukları bir hafta içinde kullanın.
NOT: Floresan etiketleme veya miyozin dekorasyonuna geçmeden önce, kaplanmış boncukları X tamponunda hazırlanan 1 mg/mL BSA içinde buz üzerinde bir haftaya kadar saklayın. Kullanmadan önce, boncukları pipetleyerek nazikçe yeniden süspanse edin ve süspansiyonu agregasyon, kötü resüspansiyon veya belirgin boncuk kaybı açısından görsel olarak inceleyin. Saklama sonrası yaygın agregasyon veya düşük geri kazanım gösteren boncuk preparatlarını kullanmayın.
- 5 µL GST-VCA (1 mg/mL), istenen konsantrasyonda 10 µL neutravidin ve 35 µL X tamponu karıştırarak 50 µL'lik bir NPF ve neutravidin kaplama karışımı hazırlayın. Kabarcık oluşumundan kaçınarak pipetle 5–10 kez yukarı-aşağı çekip iterek nazikçe karıştırın.
- Floresan etiketleme ve biyotinline miyozin dekorasyonu
- Miyozin kaplamasından önce saklama X tamponunu M tamponu ile değiştirin.
- 50 µL neutravidin-NPF kaplı boncuğu iki mikrocentrifüj tüpüne eşit olarak paylaştırın (tüp başına 25 µL).
- Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün ve süpernatantı dikkatlice uzaklaştırın. Boncukları M tamponunda hazırlanan 25 µL 1 mg/mL BSA ile yıkayın. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün, süpernatantı dikkatlice uzaklaştırın ve yıkamayı iki kez tekrarlayın.
- Kontrol boncuklarını, stok çözeltiden M tamponunda seyreltilmiş 25 µL 1 µM biotin-CF640 floresan boyası içinde yeniden süspanse edin.
- Miyozin boncuklarını, 1–5 µM kalmodulin ile desteklenmiş 25 µL 500 nM – 1 µM biyotinli miyozin içinde yeniden süspanse edin.
- Tüpleri alüminyum folyo ile kapatın ve boncuk süspansiyonlarını buz üzerinde en az 30 dakika inkübe edin. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün ve fazla biyotinli miyozin veya floresan boya içeren süpernatantı dikkatlice uzaklaştırın.
- Dekore edilmiş boncukları M tamponunda hazırlanan 25 µL 1 mg/mL BSA ile yıkayın. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün, süpernatantı dikkatlice uzaklaştırın ve yıkamayı iki kez tekrarlayın.
- Uzak-kırmızı (far-red) floresan boya ile dekore edilmiş boncukları veya miyozinle dekore edilmiş boncukları M tamponunda hazırlanan 1 mg/mL BSA içinde buz üzerinde saklayın. Miyozin-dekore boncukları 1–5 µM kalmodulin ile destekleyin ve tüm dekore boncukları tüpleri alüminyum folyo ile kapatarak ışıktan koruyun. Uzak-kırmızı floresan boya ile dekore edilmiş boncukları bir hafta içinde, miyozin-dekore boncukları ise 2–3 gün içinde kullanın.
NOT: Boncuk dekorasyonu için 500 nM – 1 µM biyotinli miyozin kullanın. Çalışma konsantrasyonunu, istenen miyozin yüzey oranına ve miyozin preparatının aktivitesine göre seçin. Standart boncuk hareketliliği deneyleri için, yukarıda açıklanan kaplama koşulları altında güçlü miyozin dekorasyonunu teşvik etmek amacıyla 1 µM biyotinli miyozin kullanın. Miyozin yüzey yoğunluğunu azaltırken veya yeni protein preparatlarını test ederken 500 nM gibi daha düşük konsantrasyonlar kullanılabilir. Deneyi uyarlarken nihai miyozin yüzey yoğunluğunu SDS-PAGE (Bkz. Bölüm 2.3), floresan tabanlı ölçümler veya daha önce kalibre edilmiş kaplama koşullarıyla karşılaştırma yoluyla doğrulayın. Boncuk dekorasyonu sırasında miyozin-I kaldıraç kolu doluluğunu korumak için kalmodulini miyozine göre molar fazlalıkta ekleyin. Standart deneyler için 500 nM – 1 µM miyozin ile birlikte 1–5 µM kalmodulin kullanın. Daha yüksek miyozin konsantrasyonları kullanırken bu aralığın üst sınırını kullanın. Optimal kalmodulin konsantrasyonunun farklı miyozin-I izoformları veya protein preparatları için ayarlanması gerekebilir. Miyozin-dekore boncukların kullanılabilir saklama süresi, immobilize edilmiş miyozin moleküllerinin korunan aktivitesine bağlı olarak değişebilir. En iyi performans genellikle boncuklar kaplamadan hemen sonra kullanıldığında elde edilir. Dekore boncukları kullanana kadar buz üzerinde, ışıktan korunmuş şekilde saklayın. Saklanan dekore boncukları kullanmadan önce, boncuk süspansiyonunu pipetle 5–7 kez yukarı-aşağı çekerek nazikçe yeniden süspanse edin ve küçük bir alikotu ışık veya floresan mikroskobu ile inceleyin. Uygun boncuk preparatları iyi dağılmış kalmalı, minimal agregasyon göstermeli ve floresan etiketler mevcut olduğunda tespit edilebilir, nispeten homojen bir floresans sergilemelidir. Üç ila beş boncuk içeren küçük kümeler kabul edilebilir; ancak yaygın agregasyon, kötü resüspansiyon, zayıf floresans, belirgin boncuk kaybı veya tüpe aşırı boncuk yapışması gösteren preparatlar kullanılmamalıdır. Miyozin-dekore boncuklar için, saklama işlemi immobilize miyozin moleküllerinin aktivitesini azaltabileceği için deney performansını daha önce doğrulanmış bir boncuk preparatı ile karşılaştırarak doğrulayın. Miyozin kaplı ve kontrol boncukları arasında artık beklenen farkları göstermeyen boncuk preparatları kullanılmamalıdır.
- Miyozin kaplamasından önce saklama X tamponunu M tamponu ile değiştirin.
- Miyozin-NPF kaplama oranının belirlenmesi
- Her boncuk tipinden (kontrol ve miyozin boncukları) 20 µL boncuk süspansiyonunu ayrı mikrocentrifüj tüplerine aktarın. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün ve süpernatantı dikkatlice uzaklaştırın. Boncukları 25 µL M tamponu ile yıkayın. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün, süpernatantı dikkatlice uzaklaştırın ve saklama tamponundaki BSA'yı uzaklaştırmak için yıkamayı bir kez tekrarlayın.
NOT: BSA'nın yeterli düzeyde uzaklaştırılması, M tamponu ile ardışık iki yıkama yapılarak ve her santrifüj adımından sonra boncuk peletini bozmadan süpernatant dikkatlice uzaklaştırılarak sağlanır. Kalıntı BSA kontaminasyonundan şüpheleniliyorsa, SDS örnek tamponu eklemeden önce ek bir M tamponu yıkaması yapın. Tutarsız boncuk geri kazanımı SDS-PAGE ile belirlenen miyozin kaplama oranının doğruluğunu etkileyebileceği için, kötü pelet geri kazanımı veya aşırı boncuk kaybı olan boncuk preparatlarından kaçının. - Yıkanmış boncukları 20 µL 1× Laemmli örnek tamponu içinde yeniden süspanse edin. Örnekleri 5 dakika boyunca kaynatın. Boncukları bir masaüstü mikrocentrifüjde 15 saniye boyunca santrifüj ederek çöktürün. Örnekleri jel elektroforezine kadar −20°C'de saklayın.
NOT: Hazırlanan boncuk örneklerini elektroforeze hazır olana kadar −20°C'de saklayın. - 5 µL 2 mg/mL BSA standardını 5 µL 2× örnek tamponu ile karıştırarak BSA standart serisini hazırlayın. Karışımı 5 dakika boyunca kaynatın. Karışımı 1× örnek tamponu ile 20 kat seyrelterek 50 ng/µL nihai konsantrasyon elde edin.
- Toplam 50 ng protein elde etmek için seyreltilmiş BSA standardından 1 µL yükleyin.
- Toplam 100 ng protein elde etmek için seyreltilmiş BSA standardından 2 µL yükleyin.
- Toplam 250 ng protein elde etmek için seyreltilmiş BSA standardından 5 µL yükleyin.
- Toplam 500 ng protein elde etmek için seyreltilmiş BSA standardından 10 µL yükleyin.
- Toplam 1.000 ng protein elde etmek için seyreltilmiş BSA standardından 20 µL yükleyin.
- Her bir 1 mg/mL protein çözeltisinden 5 µL'yi 5 µL 2× örnek tamponu ile karıştırarak neutravidin, GST-VCA ve miyozin standartlarını hazırlayın ve 0,5 mg/mL nihai konsantrasyon elde edin. Örnekleri 5 dakika boyunca kaynatın ve şerit başına 1 µg protein elde etmek için her örnekten 2 µL yükleyin.
- Örnekleri %4–20 gradyan poliakrilamid jeline yükleyin.
- 5 µL önceden boyanmış protein merdiveni (ladder) yükleyin.
- 2 µL 0,5 mg/mL neutravidin standardı yükleyin.
- 2 µL 0,5 mg/mL GST-VCA standardı yükleyin.
- 2 µL 0,5 mg/mL miyozin standardı yükleyin.
- Her bir boncuk örneğinden 20 µL'yi ayrı şeritlere yükleyin.
- Adım 2.3.3.1–2.3.3.5'te hazırlanan BSA standartlarını yükleyin.
- Jeli 1× SDS-PAGE çalıştırma tamponunda 110 V'da 30 dakika boyunca çalıştırın.
DİKKAT: Boya giderme çözeltisinde kullanılan metanol ve asetik asit yanıcı ve korozif maddelerdir. Bu reaktifleri uygun kişisel koruyucu ekipman ve kurumsal laboratuvar güvenlik prosedürlerini kullanarak işleyin. - Jeli hafif sallama ile 10 dakika boyunca Coomassie Brilliant Blue ile boyayın. Jeli, %10 metanol ve %7,5 asetik asit içeren bir çözeltide gece boyunca boyasızlaştırın (destain). Bir jel görüntüleme sistemi kullanarak jel görüntülerini elde edin.
NOT: Densitimétrique analiz için, tüm protein bantlarını doğrusal tespit aralığında tutan pozlama ayarlarını kullanarak görüntüler elde edin. Miyozin, NPF veya standart protein bantlarının doygun göründüğü aşırı pozlanmış görüntülerden kaçının. Mümkünse, doygunluğu önlemek için optimize edilmiş otomatik pozlama modunu kullanın veya birden fazla pozlama süresi elde ederek, doygun pikseller olmadan ilgili tüm bantları net bir şekilde çözen en kısa pozlamayı kullanın. Kantitatif olarak karşılaştırılacak tüm jeller için aynı görüntüleme ayarlarını kullanın. - Görüntü analiz yazılımı (Fiji/ImageJ) ve Gel Analysis aracını kullanarak bant yoğunluklarını belirleyin.
- Jel görüntüsünü Fiji'de açın. Gerekirse, Görüntü > Tür > 8-bit seçeneğini seçerek görüntüyü 8-bit gri tonlamaya dönüştürün.
- Gerekirse, Düzenle > Ters Çevir seçeneğini seçerek protein bantlarının pik olarak görünmesi için görüntüyü ters çevirin.
- Dikdörtgen seçim aracını kullanarak ilk şeridin etrafına bir ilgi alanı (ROI) çizin; ROI'nin ilgili bantları içeren tüm dikey bölgeyi kapsadığından emin olun. Analiz > Jeller > İlk Şeridi Seç seçeneğini belirleyin.
- Aynı dikdörtgen ROI'yi bir sonraki şeride taşıyın ve Analiz > Jeller > Sonraki Şeridi Seç seçeneğini belirleyin. Bu prosedürü aynı ROI boyutunu kullanarak tüm BSA standartları, saflaştırılmış protein standartları ve boncuk örnekleri için tekrarlayın.
- Tüm şeritler seçildikten sonra, Analiz > Jeller > Şeritleri Çiz seçeneğini belirleyerek yoğunluk profilleri oluşturun.
- Her bir pik için temel hattı (baseline) tanımlamak için düz çizgi aracını kullanın, ardından her bir ilgili bandın karşılık geldiği pik alanını seçmek için sihirli değnek (wand) aracını kullanın. Her bant için entegre pik alanını kaydedin.
- Komşu bantlardan veya düzensiz jel bölgelerinden kaçınarak, pikin hemen bitişiğindeki yerel arka planı kullanarak her şerit için temel hattı tutarlı bir şekilde çizerek arka plan düzeltmesi yapın. Tüm standartlar ve boncuk örnekleri için aynı temel hattı ve pik seçme kriterlerini uygulayın.
- Şerit başına 50, 100, 250, 500 ve 1.000 ng toplam proteine karşılık gelen BSA standartlarını kullanarak bir standart eğri oluşturun.
- Arka planı düzeltilmiş entegre pik alanını toplam BSA kütlesine karşı grafiğe dökün ve hesap tablosu veya grafik yazılımı kullanarak doğrusal regresyon gerçekleştirin.
- Standart eğrinin, en yüksek yoğunluklu bantların belirgin bir doygunluğu veya platoya ulaşması olmadan güçlü bir doğrusallık (R2 > 0,98) gösterdiğini doğrulayın.
- Standart eğri doğrusal değilse veya nicelendirilen bantlardan herhangi biri doygunsa, daha kısa bir pozlama kullanarak jel görüntüsünü yeniden elde edin veya daha düşük bir örnek yüklemesi kullanarak jeli tekrarlayın.
- Miyozin-NPF kaplama oranını belirlemek için kalibrasyon eğrisini kullanın.
- Boncuk örneklerindeki ve saflaştırılmış protein standartlarındaki toplam protein miktarını, doğrusal tespit aralığı içinde interpolasyon yaparak belirleyin.
- Her boncuk tipi için karşılık gelen miyozin-NPF kaplama oranını hesaplayın.
- Yeni kaplama koşulları oluştururken veya protokolü değiştirirken, tekrarlanan boncuk preparatları veya tekrarlanan jeller kullanarak ölçümler yapın.
- Rutin deneyler için, ölçülen kaplama oranını daha önce doğrulanmış preparatlarla karşılaştırın.
- Ölçülen oran beklenen aralığın dışındaysa veya tekrarlanan ölçümler tutarsızsa kaplamayı veya nicelendirmeyi tekrarlayın.
- Her boncuk tipinden (kontrol ve miyozin boncukları) 20 µL boncuk süspansiyonunu ayrı mikrocentrifüj tüplerine aktarın. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün ve süpernatantı dikkatlice uzaklaştırın. Boncukları 25 µL M tamponu ile yıkayın. Boncukları 4°C'de 2 dakika boyunca 16.000 × g hızında santrifüj ederek çöktürün, süpernatantı dikkatlice uzaklaştırın ve saklama tamponundaki BSA'yı uzaklaştırmak için yıkamayı bir kez tekrarlayın.
3. Aktin kuyruklu boncuk hareketlilik analizi
- Standart boncuk hareketliliği analizi
- Yayımlanmış saflaştırma protokolüne uygun olarak tavşan iskelet kası aseton tozundan aktin hazırlayın412 mM Tris-HCl (pH 8,0), 0,2 mM ATP ve 0,1 mM CaCl içeren G-tamponu ile dengelenmiş bir Sephacryl S-300 kolon kullanılarak, boyut dışlama kromatografisi ile monomerik globüler aktini (G-aktin) saflaştırın.₂, 1 mM NaN₃₃ve 0,5 mM DTT. Saflaştırılmış G-aktini buz üzerinde şu sıcaklıkta saklayın: 4°C ve 2-3 hafta içinde kullanın.
- Arp2/3 kompleksini, yayınlanmış protokole uygun olarak sığır beyninden saflaştırın42Saflaştırılmış proteini tek kullanımlık alikotlara ayırın, alikotları şok dondurun ve − derecede saklayın.80°C.
- Yayınlanmış protokole göre insan CapZ ekspresyonunu gerçekleştirin ve saflaştırın43Saflaştırılmış proteini tek kullanımlık alikotlara bölün, alikotları hızlıca dondurun ve − sıcaklığında saklayın.80°C.
- Yayımlanmış protokole göre kalmodülini saflaştırın44Saflaştırılmış proteini alikotlara ayırın ve alikotları −'de saklayın.20°C.
NOT: Saflaştırılmış Arp2/3 kompleksi, CP (CapZ) ve kalmodulin kullanımdan önce kalite açısından değerlendirin. Protein saflığını Coomassie ile boyanmış SDS-PAGE ile değerlendirin. Kabul edilebilir preparatlar, minimum degradasyon veya kontaminasyon bandı ile birlikte beklenen ana protein bantlarını sergilemelidir. Protein konsantrasyonunu, yeni çözünmüş alikotların 280 nm'deki absorbansını ölçerek veya standart bir kolorimetrik protein analizi (örneğin, Bradford analizi) kullanarak belirleyin. Gözle görülür çökelme gösteren, tekrarlanan dondurma-çözme döngülerine maruz kalmış veya SDS-PAGE üzerinde belirgin degradasyon sergileyen protein alikotlarını kullanmayın. Aktivite değerlendirmesi için, Arp2/3 kompleksi aktivitesi, bir piren-aktin polimerizasyon analizinde NPF bağımlı aktin montajını teşvik etme yeteneğiyle veya boncuk motilite analizinde güçlü dallanmış aktin kuyruğu oluşumuyla doğrulanabilir. CapZ aktivitesi, boncuk analizinde aktin filaman büyümesini ve kuyruk morfolojisini modüle etme yeteneğiyle veya gerektiğinde bir barbed-end (çentikli uç) kapama analizi ile değerlendirilebilir. Kalmodulin kalitesi, SDS-PAGE ile ve motilite analizlerinde miyozin-I aktivitesini destekleme yeteneğiyle değerlendirilir. Yeni bir protein preparatı kullanırken, bunu kantitatif deneyler için kullanmadan önce analiz performansını daha önce valide edilmiş bir preparatla karşılaştırın. - Hazırlayın 50 µL içeriğinde ... bulunan motilite karışımı 4 µM G-aktin (%5–10 floresan işaretli G-aktin dahil), 200 nM Arp2/3 kompleksi, 6,5–200 nM CP, 2 µM kalmodulin ve 3 µL boncuk bulamacı (1.5 µL miyozin kaplı boncuklar ve 1.5 µL kontrol boncukları), 20 mM HEPES (pH 7.5), 100 mM KCl, 1 mM MgCl içeren nihai bir tampon içinde₂, 1 mM EGTA, 1 mM MgATP, 40 mM DTT, 10 mg/mL BSA ve %0,2 metilselüloz.
- Ekle 25 µL 2'den× motilite tamponu.
- Ekle 6 µL çift distile su ile.
- Ekle 2 µL 1 M DTT'den.
- Ekle 1 µL 50 mM ATP içeren.
- Ekle 1 µL 50 mM MgCl2'lik₂.
- Ekle 5 µL 100 mg/mL BSA içeren.
- Ekle 1 µL -in / -un / -ın / -un 100 µM kalmodulin
- Ekle 1 µL -in / -un / -ın / -un 10 µM Arp2/3 kompleksi.
- Ekle 1 µL 325 nM'lik10 µM CP.
- Ekle 3 µL içeren boncuk süspansiyonundan 1.5 µL miyozin kaplı boncuklar ve 1.5 µL kontrol boncukları
NOT: Motilite karışımını, pipetiyle 3-5 kez yavaşça yukarı-aşağı çekerek nazikçe karıştırın. Protein komplekslerini bozabileceği ve aktin polimerizasyonunu etkileyebileceği için vorteksle karıştırmaktan, hızlı pipetlemeden veya kabarcık oluşumuna yol açmaktan kaçının. - Reaksiyonu, ekleyerek başlatın 4 µL -in / -un / -ın / -un 50 µM %5–10 floresan işaretli G-aktin içeren G-aktin. Hemen karıştırın ve bu zaman noktasını t = 0 olarak belirleyin.
NOT: G-aktin eklemesi ve karıştırma işleminden sonra, reaksiyon odasını doldurun ve görüntüleme işlemini mümkün olan en kısa sürede başlatın. Tekrarlanabilir kinetik ölçümler için, t = 0'dan sonraki 1–2 dakika içinde ve reaksiyon başlangıcından itibaren en geç 3 dakika içinde görüntülemeye başlayın. G-aktin eklemesi ile görüntülemenin başlaması arasındaki gerçek gecikmeyi kaydedin ve zamana bağlı kuyruk büyümesini grafiklendirirken bu gecikmeyi hesaba katın.
- Hazne hazırlığı
- Cam lamları ve lamel kapaklarını önce %70 etanol, ardından deiyonize su ile temizleyin. Cam yüzeyleri ortam havası plazması ile 10 dakika boyunca plazma temizliğine tabi tutun.
- Motilite karışımı hazırlandıktan hemen sonra uygulayın 2.3 µL reaksiyon karışımının bir cam lam üzerine aktarın. 22 mm'lik bir × yaklaşık şu oda yüksekliğine sahip bir sıkıştırma odası oluşturmak için numunenin üzerine 22 mm'lik lamel yerleştirilir: 4.3 µmHazneyi vakum gresi ile sızdırmaz hale getirin ve görüntülemeye hemen başlayın.
NOT: Oda yüksekliği, sabit bir numune hacmi ve 22 mm kullanılarak kontrol edilir × Numunenin lamel yüzeyine eşit şekilde yayıldığında tekrarlanabilir ince bir oda oluşturan 22 mm'lik lamel kullanılır. Yaklaşık oda yüksekliği, numune hacminin lamel alanına bölünmesiyle tahmin edilebilir ve ayrıca floresan boncuklar veya yüzeye bağlı floresan belirteçler kullanılarak lam ile lamel yüzeyleri arasındaki z-mesafesinin ölçülmesiyle deneysel olarak doğrulanabilir. Tutarlı bir oda geometrisi sağlamak için tüm deneylerde aynı numune hacmini, lamel boyutunu ve oda kurulum prosedürünü uygulayın. Görüntüleme öncesinde odayı görsel olarak ve mikroskop altında inceleyin. Numune, büyük hava kabarcıkları, yetersiz yayılma veya belirgin sızıntı olmaksızın merkezi görüntüleme bölgesini eşit şekilde doldurmalıdır. Hava kabarcıklarının yakınındaki bölgeleri, vakum gresi kenarlarını veya lamelin düzgün oturmadığı görünen alanları görüntülemeyin. Numune eşit yayılmadıysa, büyük hava kabarcıkları içeriyorsa veya sızıntı ya da yetersiz sızdırmazlık nedeniyle önemli bir kayma (drift) gösteriyorsa yeni bir oda hazırlayın.
DİKKAT: Plazma temizleme ekipmanını, kurumsal laboratuvar güvenlik prosedürlerine uygun olarak kullanın. Yaralanma riskini en aza indirmek için lam ve lamelllerle çalışırken uygun önlemleri alın.
- Miyozin güç vuruşu bozulmuş boncuk hareketlilik deneyi
- G-tamponu içerisinde saklanan G-aktini ön inkübasyona tabi tutun 2 mM Tris-Cl (pH 8.0), 0.2 mM ATP, 0.5 mM DTT ve 0.1 mM CaCl içeren₂ve 1 mM NaN₃₃ ile 200 µM EGTA ve 50 µM MgCl₂₂ Kullanmadan önce G-aktini Mg-G-aktine dönüştürmek için buz üzerinde 5 dakika bekletin.
- Hazırlayın 50 µL kalsiyum deneyleri için kalmodulinin 1,1 mM CaCl2 ile değiştirilmesiyle hazırlanan hareketlilik karışımı₂ miyozin güç vuruşunu bozmak için.
- Ekle 25 µL 2'den× mobilite tamponu.
- Ekleyin 6 µL çift distile su ile.
- Ekle 2 µL 1 M DTT'den.
- Ekle 1 µL 50 mM ATP'den.
- Ekle 1 µL 50 mM MgCl₂'lik₂.
- Ekle 5 µL 100 mg/mL BSA'den.
- Ekle 1 µL 55 mM CaCl2₂.
- Ekle 1 µL nin/nın/nin/nın 10 µM Arp2/3 kompleksi.
- Ekleyin 1 µL 325 nM'lik10 µM CP.
- Ekleyin 3 µL içeren boncuk süspansiyonunun 1.5 µL miyozin kaplı boncuklar ve 1.5 µL kontrol boncukları.
NOT: Aktin polimerizasyonunu başlatmadan önce, tüm bileşenler eşit şekilde dağılana kadar reaksiyon karışımını nazikçe karıştırın.
NOT: Nihai reaksiyon toplam 1,1 mM CaCl içerir2 ve yaklaşık 1,0 mM EGTA ile tahmin edilen serbest Ca²⁺ konsantrasyonu elde edilerek2+ 10 mertebesinde konsantrasyon−4 M. Fazla CaCl2'ye dayanarak2 EGTA varlığında, serbest Ca2+ konsantrasyonu yaklaşık olarak 100 µMEGTA ve Mg'yi hesaba katan MaxChelator veya benzeri bir araç kullanılarak yapılan daha hassas kalsiyum tamponu hesaplamaları2+, ATP, pH ve sıcaklık, serbest Ca²⁺ değerini tahmin eder2+ konsantrasyonun yaklaşık olarak 80–100 µM. - ... ekleyerek reaksiyonu başlatın 4 µL nın/nin 50 µM %5-10 floresan işaretli G-aktin içeren Mg-G-aktin. Hemen karıştırın ve bu zaman noktasını t = 0 olarak belirleyin.
- Görüntüleme haznesini Adım 3.1.6'da açıklandığı şekilde hazırlayın.
- Mikroskop görüntüleme
- şu değerlerde floresan görüntüler edinin 25°C 100'lük [objektif] ile donatılmış bir epifloresan mikroskop kullanılarak× yağ daldırma objektif (nümerik açıklık 1,4), harici bir metal halojenür ışık kaynağı, şarj çift bağlı aygıt (CCD) kamera ve görüntü yakalama yazılımı.
- Floresan aktini bir rhodamine/TRITC filtre seti kullanarak ve uzak kırmızı floresan boya ile işaretlenmiş boncukları bir Cy5/uzak kırmızı floresan filtre seti kullanarak görüntüleyin filtre seti
- 1 kullanarak 16-bit modunda görüntüler elde edin × 1 veya 2 × 2 kamera binning. Kantitatif olarak karşılaştırılacak tüm örnekler için kamera kazancı, aydınlatma yoğunluğu, pozlama süresi ve filtre seti aynı tutulmalıdır.
NOT: Kantitatif veriler toplanmadan önce, aktin kuyruk sinyalinin net bir şekilde tespit edilebildiği ancak doygunluğa ulaşmadığı temsili bir görüş alanı kullanarak aydınlatma şiddetini ve pozlama süresini ayarlayın. Maksimum piksel yoğunluğunun kameranın doygunluk sınırının altında kaldığını onaylamak için görüntü histogramını kontrol edin. Yeterli bir sinyal-gürültü oranı sağlayan en düşük aydınlatma şiddetini ve en kısa pozlama süresini kullanın. Farklı pozlama süreleri, kamera kazancı, binning veya aydınlatma ayarlarıyla elde edilen örnekler arasında floresan yoğunluklarını karşılaştırmayın.
- Görüntü alımına reaksiyon başlatıldıktan hemen sonra başlayın. Hem miyozin kaplı hem de kontrol boncuklarının bulunduğu alanlardan zaman ayarlı (time-lapse) görüntü dizileri elde edin. Kontrol boncuklarını uzak-kırmızı (far-red) floresan kanalı kullanarak tanımlayın.
- Kare başına 100–200 ms pozlama süresi kullanarak 20 dakika boyunca her 5–15 saniyede bir görüntüler elde edin. Aynı görüş alanı içerisindeki miyozin kaplı ve kontrol boncuklarının kuyruk büyüme kinetiklerini karşılaştırın.
NOT: Çoğu deneyde, kuyruklu yıldız kuyrukları, simetri bozulmasından sonraki ilk ~10 dakika boyunca yaklaşık olarak sabit bir hızda uzar. Reaktifler tükendikçe uzama hızı yavaşlar ve genellikle reaksiyonun başlatılmasından yaklaşık 30 dakika sonra durur.18. - Kuyruklu yıldız morfolojisini erken büyüme dinamiklerinden bağımsız olarak değerlendirmek için, kuyruklu yıldız kuyruklarının gelişmesine olanak tanımak amacıyla mobilite karışımını bir mikrosantrifüj tüpünde oda sıcaklığında 15–20 dakika inkübe edin.
- Uygula 2.3 µL reaksiyon karışımını bir lam üzerine aktarın ve Adım 3.1.6'da açıklandığı şekilde bir sıkıştırma odası (squeeze chamber) düzeneği kurun. Tüm oda alanını görüntüleyin; hem miyozin kaplı hem de kontrol boncuklarını içeren temsili görüntüler elde edin. Uzak-kırmızı floresan kanalını kullanarak kontrol boncuklarını tanımlayın ve aynı görüş alanı içindeki kuyruklu yıldız (comet-tail) morfolojilerini karşılaştırın.
NOT: Doğrudan karşılaştırma yapmak için; hem miyozin kaplı hem de kontrol boncuklarını içeren, eşit şekilde aydınlatılmış, odaklanmış ve oda kenarlarından, vakum gresinden, büyük hava kabarcıklarından veya eksik dolum olan bölgelerden uzakta yer alan görüntüleme alanlarını seçin. Agregasyon göstermiş, komşu boncuklarla örtüşen, kısmen görüş alanının dışında kalan veya görüntüleme artefaktları ya da yetersiz odaklanma nedeniyle güvenilir şekilde segmente edilemeyen boncukları hariç tutun. Bir deney kapsamındaki tüm alanlar için aynı kazanım ayarlarını kullanın. Örnekleme yapmadan önce, homojen boncuk dağılımını korumak için reaksiyon karışımını temiz bir pipet ucuyla 5–7 kez hafifçe karıştırın. Şiddetli aspirasyon ve dağıtma işlemleri aktin kuyruk ağını bozabileceği veya boncuğu kuyruk kısmından ayırabileceği için pipetleme ile karıştırma yapmayın. Aktin ağının stabilizasyonu gerekiyorsa, örnekleme öncesinde falloidin ekleyin.15,18İçeren reaksiyonlar için 4 µM aktin, final konsantrasyonu şunlar olacak şekilde phalloidin ekleyin 4 µMaktin ile yaklaşık olarak ekimolar bir orana karşılık gelecek şekilde. Örnekleme yapmadan önce reaksiyonu, ışıktan koruyarak, buz üzerinde 3–5 dakika inkübe edin.
- şu değerlerde floresan görüntüler edinin 25°C 100'lük [objektif] ile donatılmış bir epifloresan mikroskop kullanılarak× yağ daldırma objektif (nümerik açıklık 1,4), harici bir metal halojenür ışık kaynağı, şarj çift bağlı aygıt (CCD) kamera ve görüntü yakalama yazılımı.
4. Aktin kuyruk büyüme kinetiğinin ve ağ yoğunluğunun nicel analizi
NOT: Tüm görüntüleri, ImageJ tabanlı açık kaynaklı bir görüntü işleme platformu olan Fiji (versiyon 2.16.0/1.54p; https://imagej.net/software/fiji/) kullanarak analiz edin ve nicelleştirin45.
- Aktin kuyruklu yıldız büyüme hızı
- Fiji'deki Segmented Line aracını kullanarak her zaman noktasındaki aktin kuyruklu yıldız uzunluğunu ölçün. Her görüntü için kuyruk ucundan boncuğun merkezine kadar kuyruğu manuel olarak takip edin ve ölçülen uzunluğu mikrometreye dönüştürün.
- Kuyruklu yıldız uzunluğunu zamanın bir fonksiyonu olarak grafiğe dökün. Başlangıçtaki lineer büyüme fazına karşılık gelen ilk 7–10 zaman noktasını lineer regresyon kullanarak uydurun. Kuyruklu yıldız büyüme hızını, uydurulan hattın eğiminden belirleyin ve değeri µm/s veya µm/min cinsinden bildirin.
NOT: Regresyon penceresini, kuyruklu yıldız uzunluğunun zamanla yaklaşık olarak lineer şekilde arttığı erken fazdan seçin. Çoğu deneyde bu, simetri kırılmasından veya net kuyruklu yıldız uzamasının başlamasından sonraki ilk 7–10 zaman noktasına karşılık gelir. Aynı deney içindeki tüm boncuklar için aynı seçim kriterini kullanın. Büyüme farklı boncuklar için biraz farklı zamanlarda başlıyorsa, regresyon penceresinin ilk noktasını, polarize bir kuyruklu yıldızın net bir şekilde görüldüğü ve uzadığı ilk zaman noktası olarak tanımlayın. Yalnızca monotonik veya neredeyse monotonik kuyruk uzaması gösteren ardışık zaman noktalarını dahil edin ve verileri lineer regresyonla uydurun. Seçilen regresyon penceresi, belirgin bir plato, duraksama veya büyüme davranışında ani bir değişiklik olmaksızın güçlü bir lineerlik göstermelidir. Net bir polarize kuyruklu yıldız oluşturmayan, başlangıç ölçüm penceresi sırasında duraksamış veya yüksek derecede non-lineer büyüme sergileyen, kuyruklu yıldızdan ayrılan, görüş alanından çıkan, komşu boncuklar veya kuyruklarla örtüşen veya düşük odak ya da doygun floresan etkisinde kalan boncukları büyüme hızı analizinden hariç tutun.
- Aktin kuyruklu yıldız ağ yoğunluğu
- Fiji'de aktin floresan kanalını kullanarak kuyruklu yıldız ROI'sini tanımlayın. Image > Adjust > Threshold yolunu kullanarak kuyruklu yıldız floresansını yerel arka plandan ayıran bir yoğunluk eşiği uygulayın. Aynı görüntüleme ayarlarıyla aynı görüş alanı içinde elde edilen tüm kontrol ve miyozin kaplı boncuklara aynı eşikleme kriterlerini uygulayın. Eşiklenmiş ROI'yi manuel olarak inceleyin ve kuyruklu yıldız sınırının arka plandan net bir şekilde ayırt edilemediği boncukları hariç tutun. Kuyruklu yıldız ROI'si içindeki ortalama floresan yoğunluğunu ölçün ve bu değeri Icomet olarak belirleyin.
- Aynı ROI'yi, kuyruklu yıldız floresansı içermeyen yakın bir bölgeye yeniden konumlandırın. Ortalama arka plan yoğunluğunu ölçün ve bu değeri Ibackground olarak belirleyin.
- Düzeltilmiş kuyruklu yıldız yoğunluğunu (Icorr,comet) şunla hesaplayın:
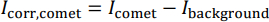
- Icorr,comet değerini aktin ağ yoğunluğu için bir gösterge olarak kullanın.
NOT: Kuyruklu yıldız zamanla büyüdüğü ve şekil değiştirdiği için, kuyruklu yıldız ROI'sinin her zaman noktasında aynı boyutlara sahip olması gerekmez. ROI'yi her deney boyunca, Triangle veya Yen otomatik eşikleme yöntemi veya manuel olarak seçilen bir eşik aralığı gibi aynı eşikleme yöntemini kullanarak tanımlayın. Arka plan çıkarma işlemi için, komşu boncuklardan, aktin ağlarından, hava kabarcıklarından veya düzensiz aydınlatmadan kaçınarak, kuyruklu yıldız ROI'sinin aynısını kuyruklu yıldız floresansı içermeyen yakın bir bölgeye yeniden konumlandırın. Aynı eşikleme yöntemini, ROI seçim prosedürünü ve arka plan seçim kriterlerini, aynı görüntüleme koşulları altında elde edilen tüm örneklere tutarlı bir şekilde uygulayın.
- Aktin kuyruklu yıldız floresan birikim hızı
- Adım 4.2'de açıklanan aynı ROI seçim prosedürünü kullanarak, her zaman noktasındaki kuyruklu yıldız ROI'sinin toplam entegre floresan yoğunluğunu ölçün. Kuyruklu yıldız floresansı içermeyen komşu bir bölgeyi kullanarak arka plan çıkarma işlemini gerçekleştirin.
- Düzeltilmiş toplam entegre floresan yoğunluğunu zamanın bir fonksiyonu olarak grafiğe dökün. İlk 7–10 zaman noktasını lineer regresyonla uydurun ve başlangıç eğimini aktin floresan birikim hızı olarak kullanın.
NOT: Yukarıda açıklanan görüntüleme koşulları altında, time-lapse alımı sırasında genellikle belirgin bir fotobeyazlama gözlemlenmez ve rutin olarak herhangi bir fotobeyazlama düzeltmesi uygulanmaz. Ancak, önemli ölçüde fotobeyazlama gözlemlenirse, beyazlama hızı, aynı görüntüleme koşulları altında elde edilen kararlı bir floresan referans bölgesinden veya kontrol örneğinden tahmin edin. Başlangıç aktin floresan birikim hızını uydurmadan önce, referans bozunma eğrisini kullanarak kuyruklu yıldız floresan yoğunluğunu normalize edin.
- Aktin kuyruklu yıldız büyüme verimliliği
- Kuyruklu yıldız büyüme hızını, aktin floresan birikim hızına bölerek aktin kuyruklu yıldız büyüme verimliliğini hesaplayın:
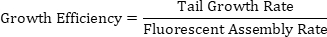
- Aktin birikiminin ne kadar verimli bir şekilde boncuk ilerlemesine dönüştüğünün bir göstergesi olarak, birim aktin birikimi başına boncuğun katettiği mesafeyi tahmin etmek için bu parametreyi kullanın.
NOT: Boncuklar arasında ortalama almadan önce her boncuk için büyüme verimliliğini ayrı ayrı hesaplayın. Her boncuk için kuyruk büyüme hızını ve floresan birikim hızını aynı başlangıç lineer büyüme penceresinden belirleyin, ardından o boncuk için büyüme verimliliğini hesaplayın. Kontrol boncukları ve miyozin kaplı boncuklar gibi her deneysel koşul içindeki bireysel boncuk değerlerinin ortalamasını alın. Eşleştirilmiş karşılaştırmalar için, aynı tepkime ve görüntüleme koşullarına maruz kaldıklarından ve böylece alanlar arası değişkenliği en aza indirdiklerinden, aynı görüş alanı içinde elde edilen kontrol ve miyozin kaplı boncukları karşılaştırın. Kantitatif analiz için, yeterli analiz edilebilir boncuk mevcut olduğunda, her bağımsız deneyden koşul başına en az 10–20 boncuğu analiz edin. Deney koşullarını belirlerken veya karşılaştırırken testi en az üç bağımsız boncuk hazırlığı veya deney günü kullanarak tekrarlayın. Her deney boyunca aynı görüntü analizi ayarlarını, eşikleme kriterlerini, ROI seçim prosedürlerini ve arka plan çıkarma yöntemlerini kullanarak görüntü ölçümlerini gerçekleştirin. Adım 4.1–4.4'te açıklanan analizler, özel makrolar olmadan standart görüntü analizi araçları kullanılarak manuel olarak gerçekleştirilmiştir.
- Kuyruklu yıldız büyüme hızını, aktin floresan birikim hızına bölerek aktin kuyruklu yıldız büyüme verimliliğini hesaplayın:
Sonuçlar
Aktin kuyruklu yıldız boncuk hareketliliği deneyi, membranla ilişkili miyozin-I'nin membran çıkıntısını yönlendirmek için aktin polimerizasyonu ile koordineli çalıştığı senaryoları yeniden canlandırarak7,8,9,10,11,12,13, miyozin-I aktivitesinin hücre ön kenarında Arp2/3 kompleksi aracılı dallanmış aktin montajı üzerindeki etkisini incelemek için kullanılmıştır. Miyozin-I ve NPF'lerin membran-aktin arayüzündeki kolokalizasyonunu taklit etmek için her iki protein de mikro ölçekli boncukların yüzeyine birlikte kaplanmış ve böylece kontrollü bir in vitro sistemde mekânsal yakınlıkları yeniden kurulmuştur (Şekil 1A,B).
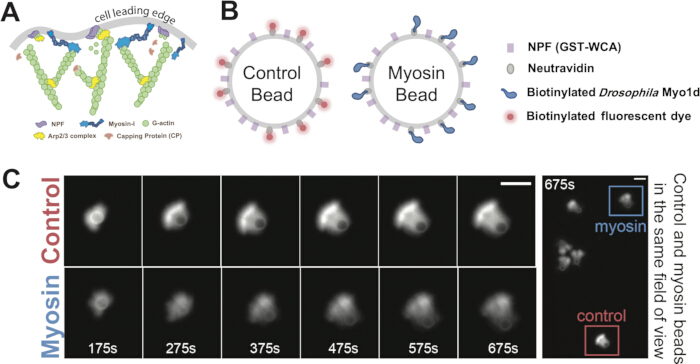
Şekil 1. Mikroölçekli boncuklar üzerinde miyozin-I aracılı dallanmış aktin montajının yeniden oluşturulması. (A) Hücre ön kenarında miyozin-I, nükleasyon destekleyici faktörler (NPF'ler), aktinle ilişkili protein 2/3 (Arp2/3) kompleksi, kapaklama proteini (CP) ve globüler aktin (G-aktin) arasındaki etkileşimleri gösteren şematik. (B) Boncuk fonksiyonelleştirme şematiği. Kontrol boncukları ve miyozin kaplı boncuklar NPF ve neutravidin ile kaplanmıştır. Neutravidin, kontrol boncukları için biyotinli uzak-kırmızı floresan boyaya veya miyozin kaplı boncuklar için biyotinli Drosophila Myo1d'ye konjuge edilmiştir. (C) Bir kontrol boncuğu ve bir miyozin kaplı boncuk için simetri kırılmasından polarize kuyruklu yıldız kuyruğu oluşumuna kadar aktin kuyruklu yıldız kuyruğu büyümesini gösteren temsili zaman serisi. Son panel, her iki boncuğu aynı görüş alanında göstermektedir. Ölçek çubuğu, 5 µm. B ve C panelleri Xu ve ark., Science Advances, DOI: 10.1126/sciadv.ado5788 (2024), AAAS'dan izinle yeniden üretilmiş/düzenlenmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Miyozin-I'nin aktin montajına olan spesifik katkısını daha iyi değerlendirmek için, buna karşılık gelen bir kontrol boncuğu da oluşturulmuştur. Kontrol boncukları, miyozin-I'nin yerini neutravidine konjuge biyotinize uzak-kırmızı floresan boyanın alması dışında, miyozin kaplı boncuklarla aynıdır (Şekil 1B). Her iki boncuk türünün aynı reaksiyon odasında karıştırılması ve aynı görüş alanında görüntülenmesi, dallanmış aktin montajının özdeş deneysel koşullar altında miyozin-I varlığında ve yokluğunda doğrudan karşılaştırılmasına olanak sağlamıştır (Şekil 1C). Ayrıca, boncuk yüzeyindeki miyozin-NPF oranı değiştirilerek, miyozin-I'nin farklı yüzey yoğunluklarındaki etkisi sistematik olarak incelenebilmiştir (Şekil 2A,B). Ek olarak, CP konsantrasyonu ayarlanarak aktin ağı yoğunluğu optimize edilmiş; böylece yoğun paketlenmiş, simetri kırılmasına dirençli yapılardan, gevşek organize olmuş ve kırılmaya eğilimli mimarilere kadar değişen ağlar oluşturulmuştur15,19,24. Bu yaklaşım, miyozin-I'nin farklı yoğunluk ve yapısal bütünlüğe sahip ağlarda dallanmış aktin montajını nasıl etkilediğinin araştırılmasına imkan tanımıştır (Şekil 2A,B).
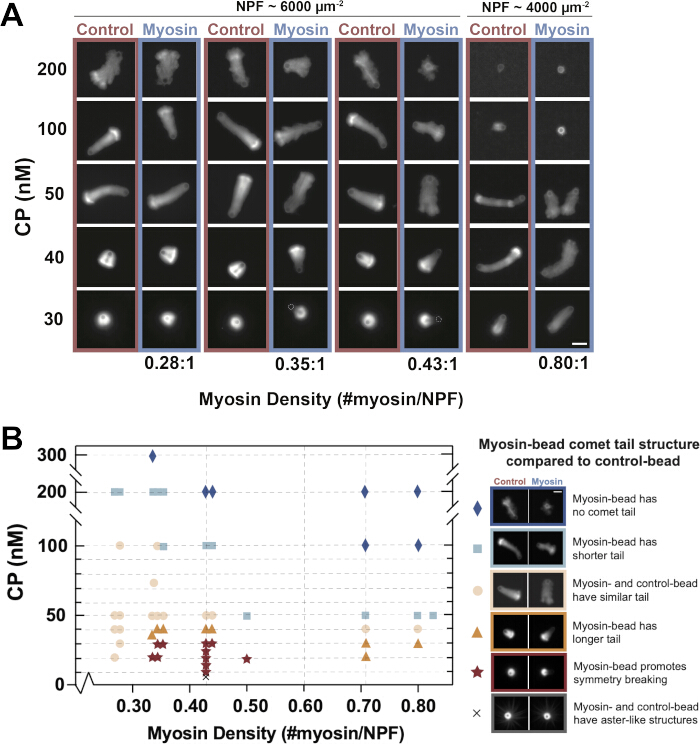
Şekil 2. Farklı miyozin yüzey yoğunlukları ve capping proteini konsantrasyonlarında aktin kuyruklu yıldız morfolojisi . (A) Farklı miyozin yüzey yoğunluklarıyla kaplanmış ve 30–200 nM capping proteini (CP), %5 rhodamine işaretli aktin içeren 4 µM aktin ve 200 nM Arp2/3 kompleksi içeren reaksiyonlarda birleştirilmiş 2-µm çaplı boncukların temsilci floresan görüntüleri. Her koşul için, kontrol boncukları ve miyozinle kaplanmış boncuklar aynı görüş alanında görüntülenmiştir. Miyozin ve nükleasyon teşvik edici faktör (NPF) yüzey yoğunlukları, Adım 2.3'te açıklandığı gibi sodyum dodesil sülfat–poliakrilamid jel elektroforezi ile belirlenmiştir. Görüntüler reaksiyon başlangıcından 20–35 dk sonra alınmıştır. Parlaklık ve kontrast, her kontrol–miyozin boncuk çifti içinde doğrusal ve özdeş olarak ayarlanmış, ancak daha iyi görselleştirme için koşullar arasında bağımsız olarak ölçeklendirilmiştir. Ölçek çubuğu, 5 µm. (B) CP konsantrasyonları ve miyozin yüzey yoğunlukları genelindeki kuyruklu yıldız sonuçlarını özetleyen kalitatif analiz haritası. Her veri noktası, belirtilen koşul altındaki eşleşmiş bir kontrol–miyozin boncuk çiftini temsil eder. Semboller; simetri kırılmasını teşvik eden miyozinle kaplı boncuklar, daha uzun kuyruklar, benzer kuyruklar, daha kısa kuyruklar, kuyruklu yıldız oluşmaması veya aster benzeri yapılar dahil olmak üzere gözlemlenen sonuçları belirtir. Veriler, her koşul için 10'dan fazla boncuk çiftinin analiz edildiği 20'den fazla bağımsız deneyden toplanmıştır. Bu şekil, izinle Xu et al., Science Advances, DOI: 10.1126/sciadv.ado5788 (2024), AAAS'den yeniden üretilmiş/düzenlenmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
Analiz bileşenleri karıştırıldığında, yüzeye bağlı NPF'ler boncuk yüzeyi çevresinde Arp2/3 kompleksi aracılı dallanmış aktin montajını stimüle etti. Tipik ve başarılı bir reaksiyonda aktin, ilk olarak boncuğu çevreleyen seyrek bir kabuk şeklinde görüldü. Polimerizasyon ilerledikçe kabuk genişledi ve ağ daha yoğun şekilde birbirine dolandı. Boncuk yüzeyindeki sürekli aktin montajı, dışa doğru ağ büyümesini tetikledi; bu durum simetri kırılmasına ve polarize bir kuyruklu yıldız kuyruğu oluşumuna yol açabiliyordu. Bir kuyruklu yıldız kuyruğu oluştuktan sonra, boncuk yüzeyindeki süregelen aktin nükleasyonu ve polimerizasyonu, sürekli boncuk hareketini destekledi (Şekil 1C). Aktin kabuğu oluşumu, simetri kırılması, kuyruk uzaması ve boncuk itişi şeklindeki bu ardışık özellikler, analiz yönteminin düzgün çalıştığının görsel göstergeleri olarak hizmet etti.
Orijinal çalışmamızda raporlandığı18 ve Şekil 2A,B'de gösterildiği üzere, kuyruklu yıldız morfolojisi hem CP konsantrasyonuna hem de miyozin yüzey yoğunluğuna karşı duyarlıydı. Standart analiz koşulları altında (200 nM Arp2/3 kompleksi, 50 nM CP, miyozin:NPF oranı = 0,43:1), miyozin kaplı boncuklar genellikle kontrol boncuklarına göre daha seyrek veya daha yaygın aktin kuyrukları oluşturdu (Şekil 2A). Düşük CP konsantrasyonlarında (<30 nM), aktin yoğun ve kırılmaya dirençli kabuklar şeklinde birleşti. Bu koşullar altında, kontrol boncukları genellikle kapsüllenmiş halde kaldı ve simetri kırılması yaşamadı; buna karşın miyozin kaplı boncukların simetriyi kırma ve çevreleyen aktin kabuğundan kurtulma olasılığı daha yüksekti (Şekil 2A,B). Yüksek CP konsantrasyonlarında (>200 nM), ağ kohezyonu azaldı ve miyozin varlığı aktin ağını daha da destabilize ederek aktin dökülmesini teşvik etti ve stabil kuyrukların oluşumunu engelledi (Şekil 2A,B). Koşullara bağlı olan bu sonuçlar, araştırmacıların uygun analiz rejimlerini belirlemek ve analiz performansındaki sorunları gidermek için kullanabilecekleri faydalı referanslar sağlamaktadır.
Myosin-I'nin aktin kuyruklu yıldız morfolojisi üzerindeki etkisi, kuyruklu yıldız kuyruğunun ortalama floresan yoğunluğu ölçülerek değerlendirilebilir. Kuyruklu yıldız kuyruğu bölgesi, Adım 4.2'de açıklandığı üzere bir yoğunluk eşiği kullanılarak tanımlanmış ve ardından bu bölgedeki ortalama floresan yoğunluğu ölçülmüştür (Şekil 3A). Kontrol ve myosin kaplı boncukların aynı görüş alanında görüntülendiği eşleştirilmiş görüntüleme koşulları altında, bu değer aktin ağ yoğunluğu için göreceli, kalibre edilmemiş bir temsilci olarak kullanılmış olup, daha düşük ortalama yoğunluk daha seyrek bir ağı göstermiştir. Standart analiz koşulları altında, myosin kaplı boncuklar tipik olarak kontrol boncuklarına göre daha düşük ortalama floresan yoğunluğa sahip kuyruklu yıldız kuyrukları oluşturmuştur ve bu durum azalmış görünür ağ yoğunluğu ile tutarlıdır (Şekil 3C).
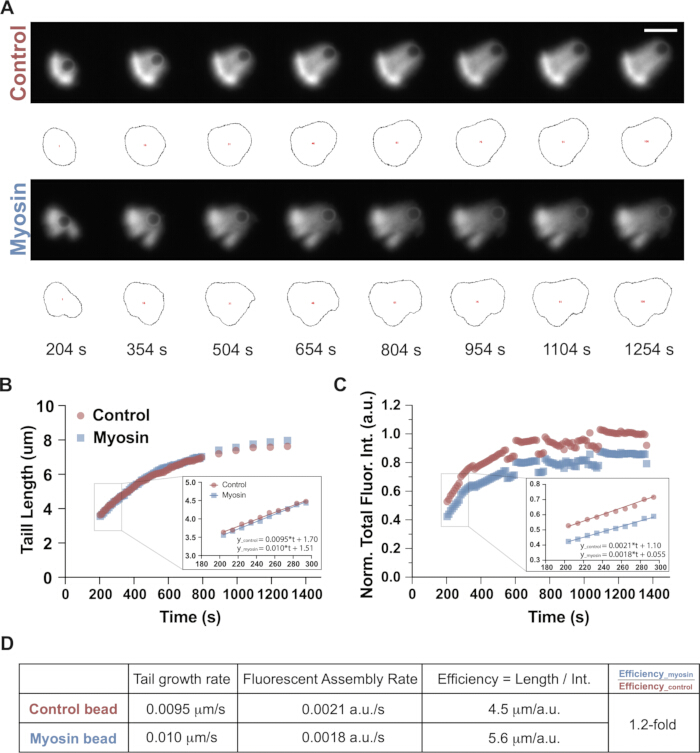
Şekil 3. Aktin kuyruk büyüme kinetiği ve birleşme verimliliği için nicelleştirme iş akışı. (A) 50 nM capping protein (CP) varlığında, bir kontrol boncuğu ve 0,43:1 myosin kaplı bir boncuktan elde edilen kuyruk büyümesinin temsilci zaman serileri. Siyah dış hatlar, floresans yoğunluğu ölçümleri için Fiji kullanılarak belirlenen kuyruk ilgi alanlarını (ROI'ler) göstermektedir. Reaksiyon koşulları: %5 rhodamine işaretli aktin içeren 4 µM aktin, 200 nM actin-related protein 2/3 (Arp2/3) kompleksi ve 50 nM CP. Ölçek çubuğu, 5 µm. (B) Panel (A)'da gösterilen temsilci kontrol-myosin boncuk çifti için zamanın bir fonksiyonu olarak çizilmiş kuyruk uzunluğu. İç ek, lineer uyum için kullanılan zaman penceresini göstermektedir ve kuyruk büyüme hızları, uyum çizgilerinin eğimlerinden belirlenmiştir. (C) Panel (A)'da gösterilen temsilci kontrol-myosin boncuk çifti için zamanın bir fonksiyonu olarak çizilmiş normalize edilmiş toplam kuyruk floresans yoğunluğu. Kontrol ve myosin boncukları, 1100 ile 1300 s arasındaki kontrol boncuklarının ortalama floresans yoğunluğuna göre normalize edilmiştir. İç ek, lineer uyum için kullanılan zaman penceresini göstermektedir ve floresans birleşme hızları, uyum çizgilerinin eğimlerinden hesaplanmıştır. (D) Panel (A)'da gösterilen temsilci kontrol-myosin boncuk çifti için kuyruk büyüme hızını, floresans birleşme hızını ve büyüme verimliliğini gösteren özet tablo. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Myosin-I'nin kuyruklu yıldız tipi (comet-tail) büyüme kinetiği üzerindeki etkisi, hem kuyruk uzaması hem de zamanla aktin floresans birikimi ölçülerek nicelendirilebilir. Çoğu deneyde, kuyruklar simetri kırılmasını takip eden ilk ~10 dk boyunca yaklaşık sabit bir hızla büyümüştür. Polimerizasyon bileşenleri tükendikçe, uzama kademeli olarak yavaşlamış ve genellikle reaksiyon başlangıcından yaklaşık 30 dk sonra durmuştur. Büyüme kinetiğini nicelendirmek için, kuyruk uzunluğu ve toplam floresans yoğunluğu zamanın bir fonksiyonu olarak grafiğe dökülmüştür (Şekil 3B,C). Başlangıçtaki lineer faza karşılık gelen ilk 7–10 veri noktası, lineer regresyon kullanılarak fit edilmiştir (Şekil 3B,C, ekler). Bu fitlerin eğimleri, sırasıyla başlangıç kuyruk büyüme hızını ve aktin floresans montaj hızını temsil etmektedir. Büyüme verimliliği, aktin polimerizasyonunun ne kadar etkili bir şekilde üretken boncuk yer değiştirmesine dönüştürüldüğünü nicelendirmek amacıyla, kuyruk büyüme hızının aktin floresans montaj hızına bölünmesi olarak tanımlanmıştır (Şekil 3D). Şekil 3A–D'de gösterilen temsilci örnekte, myosin kaplı boncuk 0,60 µm/min (0,010 µm/s) büyüme hızı sergilerken, kontrol boncuğu için bu değer 0,57 µm/min (0,0095 µm/s) olarak görülmüştür (Şekil 3B,D). Karşılık gelen büyüme verimlilikleri sırasıyla 5,6 ve 4,5 µm/yoğunluk birimi olup, myosin kaplı boncuk için yaklaşık 1,2 kat daha yüksek bir değere tekabül etmektedir (Şekil 3D). Standart koşullar altında, orijinal çalışmamızda18 daha önce bildirildiği üzere, myosin kaplı boncuklar genellikle kontrol boncuklarıyla karşılaştırılabilir büyüme hızları (myosin: 0,69 ± 0,10 µm/min; kontrol: 0,66 ± 0,20 µm/min), beraberinde daha düşük bir aktin floresans montaj hızı (kontrolün yaklaşık 0,76 katı) ve yaklaşık 1,4 kat daha yüksek bir büyüme verimliliği sergilemiştir. Bu değerler, beş bağımsız deneyde her koşul için elde edilen 11 boncuk çiftinden ortalama ± SD olarak rapor edilmiştir. İstatistiksel analiz, orijinal çalışmada18 açıklandığı üzere, iki kuyruklu eşleştirilmiş t-testi kullanılarak gerçekleştirilmiştir.
Miyozin güç vuruşunun katkısını değerlendirmek ve gözlemlenen etkilerin miyozin yüzey doluluğuna bağlı sterik engellemeden kaynaklanma olasılığını dışlamak için, boncuk hareketlilik deneyi miyozin-I güç vuruşu aktivitesini bozan koşullar altında gerçekleştirilebilir. Bu protokolde, reaksiyon karışımına 1.1 mM Ca2+ eklenerek miyozin-I motor aktivitesi inhibe edilmiştir. Yükseltilmiş Ca2+, kalmodulinin miyozin-I kaldıraç kolundan ayrılmasını teşvik ederek kaldıraç kolu rijitliğini azaltmış ve kuvvet üretme yeteneğini bozmuştur46,47,48. Bu koşullar altında miyozin-I, aktin ile dinamik olarak ilişkili kalmış ancak aktin kaymasını desteklememiştir (Şekil 4A,B); bu durum, motor aktiviteye bağımlı etkilerin değerlendirilmesi için kullanışlı bir kontrol sağlamıştır18.
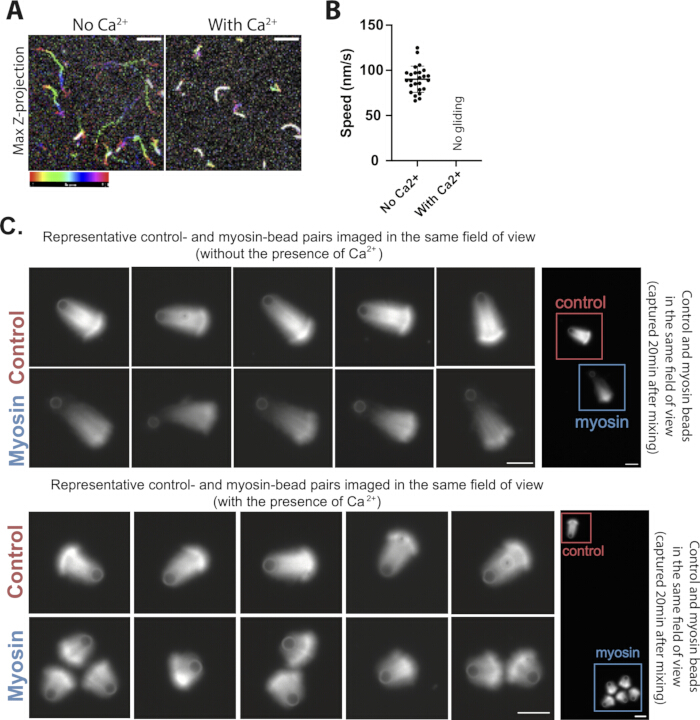
Şekil 4. Boncuk hareketliliği deneyinde Myo1d motor aktivitesini değerlendirmek için kalsiyum tabanlı kontrol. (A) Yükseltilmiş kalsiyum yokluğunda Myo1d kaplı bir yüzey üzerinde hareket eden aktin filamentlerinin veya 100 µM serbest kalsiyum varlığında verimsiz girdap desenleri oluşturan filamentlerin zamanla birleştirilmiş görüntüleri. Gökkuşağı renk çubuğu, 5 s aralıklarla elde edilen 61 kare boyunca zaman ilerlemesini göstermektedir. Ölçek çubuğu, 5 µm. (B) 100 µM serbest kalsiyum yokluğunda ve varlığında aktin kayma hızının nicelendirilmesi (N = 2 bağımsız deney; n = 25 filament). Bu koşullar altında, 100 µM serbest kalsiyum varlığında verimli aktin kayması gözlemlenmemiştir. Hata çubukları SD'yi temsil eder. (C) 100 µM serbest kalsiyum yokluğunda veya varlığında birleştirilmiş temsili kontrol ve miyozin kaplı boncuk çiftleri. Her koşul için beş temsili boncuk çifti gösterilmiştir. Her çift içerisinde, kontrol boncuğu ve miyozin kaplı boncuk aynı görüş alanında görüntülenmiştir. Görüntüler, reaksiyon başlangıcından yaklaşık 15–20 dk sonra elde edilmiştir. Parlaklık ve kontrast, her kontrol-miyozin boncuk çifti içinde doğrusal ve özdeş olarak ayarlanmış ancak koşullar arasında bağımsız olarak ölçeklendirilmiştir. Reaksiyon koşulları: %5 rodamin etiketli aktin içeren 4 µM aktin, 200 nM aktin ilgili protein 2/3 (Arp2/3) kompleksi ve 50 nM kapama proteini (CP). Ölçek çubukları, 5 µm. A ve B panelleri Xu ve ark., Science Advances, DOI: 10.1126/sciadv.ado5788 (2024), AAAS'tan izin alınarak yeniden üretilmiş/düzenlenmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
Deney doğru şekilde gerçekleştirildiğinde, yüksek Ca2+ koşulları altında analiz edilen miyozin kaplı boncuklar, kontrol boncuklarınkilerle karşılaştırılabilir ağ yoğunluklarına sahip daha kısa aktin kuyrukları oluşturmuştur (Şekil 4C). İki bağımsız deneyden alınan beş temsili kontrol ve miyozin kaplı boncuk çifti gösterilmiştir. Bu kalitatif sonuç, tekrarlanan deney hazırlıkları boyunca tutarlı bir şekilde gözlemlenmiş olup orijinal çalışmada bildirilen kantitatif analizle desteklenmektedir18. Bu beklenen sonuç, standart koşullar altında gözlemlenen ağ farklılıklarının, yalnızca miyozin yüzey doluluğundan ziyade aktif bir miyozin güç vuruşuna bağlı olduğunu göstermektedir. Bu nedenle, yüksek Ca2+ koşulu, dallanmış aktin ağı organizasyonundaki değişikliklerin miyozin motor aktivitesinden kaynaklanıp kaynaklanmadığını değerlendirmek için temel bir kontrol görevi görür.
Tartışma
Aktin kuyruklu yıldız boncuk hareketliliği deneyi, Arp2/3 kompleksi aracılı dallanmış aktin montajını ve bunun itici kuvvetler oluşturmadaki rolünü incelemek için iyi tanımlanmış bir in vitro yeniden yapılandırma sistemidir14,15,16,17. Bu sistem, dallanmış aktin montajının biyokimyasal düzenlemesini14,15,26,27,31,49,50,51 ve kuvvet üretimini20,21,22,23,52 çözümlemek için yaygın olarak uygulanmış, aynı zamanda aktin ağlarının ortaya çıkan aktif madde özelliklerinin kantitatif çalışmaları için bir çerçeve sağlamıştır19,35,36,53. Bu yeniden yapılandırılmış sisteme miyozinin, özellikle miyozin-I'in18 dahil edilmesiyle modifiye edilen deney, miyozin-aktin etkileşiminin membran arayüzündeki aktin montajını ve kuvvet üretimini nasıl modüle ettiğinin incelenmesine olanak tanır ki bu alan nispeten az araştırılmıştır. Özellikle, bu sistemdeki miyozin-I, aktin ağı yeniden şekillenmesi ve kuvvet üretimindeki rollerini incelemek amacıyla diğer miyozin motorları ile kolayca değiştirilebilir. Örneğin, farklı miyozin sınıflarının aktin organizasyonuna ve ilgili fizyolojik süreçlere nasıl katkıda bulunduğunu araştırmak için miyozin V (kargo taşınımı)54, miyozin VI (endositik trafik ve membran dinamiği)55,56, miyozin VII ve XV (stereosilya ve mikrovillüs organizasyonu)57,58,59, miyozin X (filopodyum oluşumu)60,61 ve miyozin XIX (mitokondriyal dinamikler)62 sisteme dahil edilebilir.
Birkaç kritik parametrenin dikkatle kontrol edilmesi şartıyla, assay yüksek düzeyde tekrarlanabilirdir. İlk olarak, güçlü kuyruklu yıldız (comet-tail) oluşumu için yüksek kaliteli monomerik G-aktin esastır. G-aktinin, yerleşik protokoller41 kullanılarak tavşan iskelet kası aseton tozundan saflaştırılmasını öneririz. 2–3 günlük diyalizden sonra, monomerik aktin, G-tamponunda (2 mM Tris-HCl, pH 8.0; 0.2 mM ATP; 0.1 mM CaCl2; 1 mM NaN3; ve 0.5 mM DTT) Sephacryl S-300 ile jel filtrasyonu yoluyla daha da saflaştırılmalıdır. Elüsyon zirvesinin hemen ardından toplanan fraksiyonlar kullanılmalıdır. Saflaştırılmış G-aktin, 4°C'de buz üzerinde saklandığında tipik olarak 2–3 hafta boyunca güçlü polimerizasyon aktivitesini korur ve dördüncü haftaya kadar kullanılabilir kalabilir, ancak performans genellikle bundan sonra azalır. Seyrek, kırılgan aktin ağları ve tutarsız kuyruk büyümesi ile karakterize edilen azalmış kuyruklu yıldız sağlamlığı, genellikle bozulmuş aktin kalitesine işaret eder. İkinci olarak, NPF aktivitesi kuyruklu yıldız oluşumunu kritik düzeyde belirler. İnsan nöronal Wiskott–Aldrich sendromu proteininden (N-WASP) elde edilen ticari GST-etiketli WCA domaini (GST-VCA), güçlü ve sürdürülebilir bir nükleasyon aktivitesi sağlar ve GST dimerizasyonu bu aktiviteyi daha da artırır63. Boncuk kaplamasından önce, herhangi bir NPF konstrüktünün piren-aktin polimerizasyon assay'i ile doğrulanmasını öneririz. Ticari GST-VCA'nın aktivitesi bir referans standart olarak hizmet edebilir. Özellikle, burada kullanılan ticari GST-VCA, poliprolin bölgesinden yoksundur ve bu nedenle profilin–aktin kompleksleri ile etkileşime girmez26. Üçüncü olarak, kuyruklu yıldız büyümesinin güvenilir şekilde görüntülenmesi, dikkatli lam ve lamel hazırlığı gerektirir. Lam ve lamellerin su ve etanolle iyice temizlenmesini, ardından kullanımdan hemen önce plazma temizliği yapılmasını öneririz. Mevcut olduğunda, spesifik olmayan protein adsorpsiyonunu minimize ettikleri ve tekrarlanabilirliği artırdıkları için polietilen glikol–silanize lameller26 tercih edilir. Motilite karışımına yeterli konsantrasyonda BSA eklenmesi, spesifik olmayan yüzey etkileşimlerini daha da azaltabilir ve tutarlı assay performansını destekleyebilir. Dördüncü olarak, hazneye uygulanan örnek hacmi, güvenilir ölçümler için kritiktir15,16,17. Aşırı örnek hacmi, boncukların sürüklenmesine neden olarak kuyruklu yıldız uzamasının doğru şekilde izlenmesini engeller. Buna karşılık, yetersiz örnek hacmi boncukları lam ile lamel arasında sıkıştırarak sürtünmeyi artırır ve boncukları immobilize eder. Bu mekanik kısıtlama, kuyruklu yıldız morfolojisini bozabilir ve ölçülen büyüme kinetiğini değiştirebilir. Bu nedenle, tekrarlanabilir sonuçlar için hem hazne yüksekliğinin hem de örnek hacminin optimize edilmesi esastır. Her deneysel düzenek için örnek hacminin ampirik olarak optimize edilmesini öneririz. Burada açıklandığı gibi 22 mm × 22 mm'lik bir lamel kullanıldığında, 2.1–2.3 µL motilite karışımının uygulanması yaklaşık 4.3 µm'lik bir hazne yüksekliği oluşturur ve aşırı sürüklenme veya sıkışma olmadan 2.0-µm çapındaki boncukların stabil konumlanmasını sağlar. Farklı boyutta bir lamel kullanıldığında; eşit hazne dolumu, stabil boncuk konumlanması ve minimum örnek sürüklenmesi elde etmek için örnek hacmi buna göre ayarlanmalıdır.
Kuyruklu yıldız kuyrukları oluşmazsa, aktin polimerizasyon yeterliliğini ve NPF aktivitesini doğrulayın. Simetri kırılması gerçekleşmezse, ağ yoğunluğunu düzenlemek için CP konsantrasyonunu ayarlayın. Aşırı yoğun ağlar kırılmaya direnç gösterirken, çok seyrek ağlar yapısal bütünlükten yoksundur. Miyozin kaplı boncuklar kontrol boncuklarından farklılık göstermezse, miyozin yüzey yoğunluğunu ve motor aktivitesini teyit edin. Kalite kontrol için kabul kriteri, mutlak bir sayısal eşikten ziyade fonksiyonel temellidir. Yeni bir hazırlık, önceden doğrulanmış bir hazırlıkla gözlemlenen kuyruklu yıldız kuyruğu oluşumunu ve büyümesini ( Şekil 3'te gösterildiği gibi) yeniden oluşturuyorsa kabul edilebilir sayılır. Ayrıca, miyozin, Arp2/3 kompleksi, NPF, CapZ veya aktinin her yeni hazırlığı, nicel deneyler arasında tutarlılığı sağlamak için kullanım öncesinde uygun kalite kontrol analizleri kullanılarak değerlendirilmeli ve önceden doğrulanmış bir hazırlıkla karşılaştırılmalıdır (bakınız Protokol bölüm 3.1).
Sonuçlar yorumlanırken bu deneyin birkaç sınırlaması göz önünde bulundurulmalıdır. İlk olarak, floresans yoğunluğu, aktin ağ yoğunluğu için göreceli ve kalibre edilmemiş bir vekil parametre olarak kullanılır; bu nedenle karşılaştırmalar yalnızca özdeş görüntüleme ayarları altında görüntülenen ve aynı eşikleme iş akışı kullanılarak analiz edilen örnekler arasında yapılmalıdır. İkinci olarak, boncuk hareketliliği, kuyruk büyümesi ve büyüme verimliliği, kuvvet üreten ağ davranışının dolaylı okumalarını sağlar ancak kuvvetin doğrudan ölçümlerini oluşturmaz. Ağ tarafından üretilen kuvvetleri nicelleştirmek için optik tuzaklama veya kuvvetle kalibre edilmiş membran deformasyon deneyleri64,65 gibi doğrudan mekanik ölçümler gereklidir. Üçüncü olarak, bu deney aktin ağı ultrastrüktürünü, örneğin filaman oryantasyonunu, dal yoğunluğunu veya yerel miyozin organizasyonunu doğrudan çözümlemez. Nanoscale yapı karakterizasyonu için elektron mikroskopisi veya süper çözünürlüklü görüntüleme gibi tamamlayıcı yaklaşımlar gerekebilir. Son olarak, sert mikron boyutundaki boncukların kullanımı, basitleştirilmiş ve deneysel olarak yönetilebilir bir arayüz sağlar ancak hücresel membranların deforme olabilirliğini, eğrilik heterojenliğini, lipid hareketliliğini veya moleküler karmaşıklığını yansıtmaz. Bu nedenle, sitoiskelet bileşenlerinin hücre ön kenarında nasıl koordine olduğunun araştırılması için fizyolojik olarak daha ilgili arayüzlerin gelecekte geliştirilmesi önemli olacaktır.
Genel olarak, bu yeniden oluşturma yaklaşımı, protein kompozisyonu ve konsantrasyonu üzerinde hassas kontrol sağlayarak, tekil bileşenlerin hücresel sistemlerde başarılması zor olan yöntemlerle mekanistik olarak analiz edilmesine olanak tanır. Bu yaklaşım, moleküler motorların dallanmış aktin ağlarını nasıl yeniden şekillendirdiğini ve membran benzeri arayüzlerde kuvvet üretimini nasıl yönlendirdiğini incelemek için çok yönlü bir platform sunar. Uygun doğrulama işlemleriyle bu analiz, farklı miyozin sınıflarının, mutant veya hastalıkla ilişkili motor varyantlarının ve kuvvete duyarlı aktin bağlayıcı proteinlerin dinamik aktin ağları içindeki mekanik geri bildirimi nasıl düzenlediğini incelemek için genişletilebilir. Daha geniş açıdan bu sistem, moleküler ölçekli motor aktivitesini mezölçekli sitoskeletal organizasyon ve mekanik işlevle ilişkilendirmeye yardımcı olur; bu da hücre hareketliliği, endositoz ve membran yeniden şekillenmesi için önemli çıkarımlar sunar.
Açıklamalar
Yazarlar, herhangi bir rakip finansal çıkar veya çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Protein saflaştırma konusundaki mükemmel teknik yardımları için Dr. Daniel Safer ve Rick Wike'a teşekkür ederiz. Arp2/3 kompleksi ve CapZ proteinlerini cömertçe sağladıkları için Dr. Roberto Dominguez'e, özellikle Dr. Malgorzata Boczkowska ve Dr. Grzegorz Rebowski'ye teşekkür ederiz. Ayrıca, proje boyunca değerli katkıları için Dr. Luther Pollard'a, Dr. Faviolla A. Báez-Cruz'a ve Ostap ile Dominguez laboratuvarlarının tüm üyelerine teşekkür ederiz. Bu çalışma, National Institutes of Health grant R37 GM057247 (E.M.O.'ya) tarafından desteklenmiştir. E.M.O. ve M.X. kısmen National Science Foundation (CMMI-1548571) tarafından desteklenmiştir. Taslak revizyonu sırasında dil düzenlemesine yardımcı olmak için ChatGPT kullanılmıştır. Yazarlar, yapay zeka destekli tüm içeriği gözden geçirmiş, düzenlemiş ve nihai taslağın tüm sorumluluğunu üstlenmişlerdir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Adenozin 5′-trifosfat disodyum tuzu hidrat | Sigma | A26209 | ATP içeren tamponların hazırlanmasında kullanılır; alikotlara ayrılarak −20°C'de saklanır. |
| Arp2/3 kompleksi | Kurum içi hazırlandı | N/A | Dallanmış aktin ağlarını nüklelemek için kullanılır; Ref. 42'ye göre saflaştırılmıştır. |
| Biyotin-CF640 floresan boya | Biotium | 80032 | Kontrol boncuklarını floresanla işaretlemek için kullanılır; ışıktan korunmalı ve −80°C'de saklanmalıdır. |
| Biyotinile Myo1d | Kurum içi hazırlandı | N/A | Miyozin kaplı boncukları dekore etmek için kullanılan motor protein; Ref. 18 ve 38–40'ta açıklandığı gibi hazırlanmıştır. |
| Sığır serum albümini | Sigma | A7906 | Boncuk bloklama ve boncuk saklama tamponları için kullanılır; filtrelenmiş bir stok çözelti hazırlayın. |
| Kalsiyum klorür | Sigma | C7902 | X tamponunda ve kalsiyum bozma deneylerinde kullanılan tampon bileşeni. |
| Kalmodulin | Kurum içi hazırlandı | N/A | Miyozin içeren reaksiyonlara ve boncuk saklama tamponuna eklenir; Ref. 44'e göre saflaştırılmıştır. |
| Karboksilat polistiren boncuklar (2,0 µm çapında) | Polysciences | 18327-10 | NPF, NeutrAvidin, floresan boya ve miyozin kaplama için katı destek olarak kullanılır; 4°C'de saklanır. |
| CCD kamera | Teledyne | 01-RET-R6-R-M-14-C-OC | Time-lapse mikroskopi sırasında floresans görüntüleme için kullanılır. |
| Coomassie Brilliant Blue boyası | Sigma | B7920 | Densitometrik analiz öncesinde SDS-PAGE jellerini boyamak için kullanılır. |
| Lamel, 22 mm × 22 mm, #1.5 | Globe | 1404-15 | Sıkıştırma hücrelerini oluşturmak için mikroskop lamlarıyla birlikte kullanılır. |
| Ditiyotreitol (DTT) | GoldBio | DTT10 | Tamponlarda ve mobilite karışımlarında kullanılan indirgeyici ajan; −20°C'de saklanır. |
| Kuru scroll vakum pompası | Agilent Technologies | IDP3B01 | Plazma temizleme sistemini çalıştırmak için kullanılır. |
| EGTA | GoldBio | E-217-100 | M tamponu, mobilite tamponu ve aktin ön işlemesinde kullanılan kalsiyum şelatörü. |
| Harici ışık kaynağı | Leica | EL6000 | Floresans mikroskobu için metal halojenür ışık kaynağı. |
| Fiji (ImageJ) | Açık kaynak | N/A | Kuyruklu yıldız kuyruk uzunluğu, floresans yoğunluğu ve ağ yoğunluğu analizi için kullanılır (versiyon 2.16.0/1.54p). |
| Floresans mikroskobu | Leica | DMIRB | Aktin kuyruklu yıldız kuyruklarını görüntülemek için kullanılan ters epifloresans mikroskobu. |
| Buzul asetik asit | Fisher Chemical | BP2401-212 | SDS-PAGE jel boya giderme çözeltisinin bileşeni; korozif olduğundan uygun önlemlerle kullanın. |
| GST-VCA | Cytoskeleton | VCG03-A | Arp2/3 aracılı aktin montajı için kullanılan nükleasyon teşvik edici faktör; alikotlara ayrılarak −80°C'de saklanır. |
| HEPES | GoldBio | H-400-1 | X tamponu, M tamponu ve mobilite tamponunda kullanılan tamponlama reaktifi. |
| İnsan CapZ | Kurum içi hazırlandı | N/A | Aktin ağ yoğunluğunu düzenlemek için kullanılan kapaklama proteini; Ref. 43'e göre saflaştırılmıştır. |
| Magnezyum klorür | Spectrum Chemical | M1035 | Reaksiyon tamponlarında ve aktin ön işlemesinde kullanılan tampon bileşeni. |
| MetaMorph görüntüleme yazılımı | Molecular Devices | N/A | Mikroskop kontrolü ve görüntüleme için kullanılır (versiyon 7.10.4.459). |
| Metanol | Sigma | MX0485-3 | SDS-PAGE jel boya giderme çözeltisinin bileşeni; yanıcıdır, kurum güvenlik prosedürlerine göre kullanın. |
| Metilselüloz | Sigma | M0387 | Çözelti viskozitesini artırmak için mobilite tamponuna eklenir (1500 cP). |
| Mikroskop lamları | Corning | 2947-75X25 | Mikroskopi için sıkıştırma hücreleri oluşturmak için kullanılır. |
| NeutrAvidin proteini | Thermo Fisher Scientific | 31000 | Biyotinile proteinlerin boncuk yüzeylerine immobilizasyonu için kullanılır; alikotlara ayrılarak −80°C'de saklanır. |
| PageRuler Plus Prestained Protein Ladder | Thermo Scientific | 26619 | SDS-PAGE analizi için kullanılan moleküler ağırlık markörü; −20°C'de saklanır. |
| Plazma temizleyici | Harrick Plasma | PDC-32G | Hücre montajı öncesinde mikroskop lamlarını ve lamellerini plazma ile temizlemek için kullanılır. |
| Polietersülfon şırınga filtresi, 0,22 µm | Sigma | SLGPR33RS | Sığır serum albümini stok çözeltisini alikotlara ayırmadan önce filtrelemek için kullanılır. |
| Potasyum klorür | Fisher BioReagents | BP366-1 | Analiz tamponlarında iyonik gücü korumak için kullanılan tuz. |
| Tavşan iskelet kası aktini | Kurum içi hazırlandı | N/A | Ref. 41'e göre saflaştırılmış ve aktin kuyruklu yıldız kuyruğu montaj analizleri için G-aktin olarak kullanılmıştır. |
| Soğutmalı mikrosantrifüj | Eppendorf | EP-5415R | Boncuk hazırlama ve yıkama aşamalarında boncukları çöktürmek için kullanılır. |
| Döner tüp karıştırıcı (tezgah üstü rotatör) | Cole-Parmer | EW-04397-40 | Boncuk süspansiyonunu korumak için boncuk kaplama inkübasyonları sırasında kullanılır. |
| Tris/Glisin/SDS yürütme tamponu (10×) | Bio-Rad | 1610732 | SDS-PAGE elektroforezi öncesinde 1× olacak şekilde seyreltin. |
| Vakum gresi | High Vac Depot | 408524 | Floresans görüntüleme öncesinde sıkıştırma hücrelerini sızdırmaz hale getirmek için kullanılır. |
| %4–%20 gradyanlı SDS-poliakrilamid jel | Thermo Fisher Scientific | XP04205BOX | Boncukla ilişkili proteinlerin SDS-PAGE analizi için kullanılır; 4°C'de saklanır. |
Kaynaklar
- Blanchoin L, Boujemaa-Paterski R, Sykes C, Plastino J. Actin dynamics, architecture, and mechanics in cell motility. Physiol Rev. 2014;94(1):235-63.
- Svitkina T. The actin cytoskeleton and actin-based motility. Cold Spring Harb Perspect Biol. 2018;10(1).
- Papalazarou V, Machesky LM. The cell pushes back: The Arp2/3 complex is a key orchestrator of cellular responses to environmental forces. Curr Opin Cell Biol. 2021;68:37-44.
- Krendel M, Gauthier NC. Building the phagocytic cup on an actin scaffold. Curr Opin Cell Biol. 2022;77:102112.
- Yang C, et al. Actin polymerization promotes invagination of flat clathrin-coated lattices in mammalian cells by pushing at lattice edges. Nat Commun. 2022;13(1):6127.
- Clarke DN, Martin AC. Actin-based force generation and cell adhesion in tissue morphogenesis. Curr Biol. 2021;31(10):R667-R80.
- McConnell RE, Tyska MJ. Leveraging the membrane-cytoskeleton interface with myosin-1. Trends Cell Biol. 2010;20(7):418-26.
- Almeida CG, et al. Myosin 1b promotes the formation of post-Golgi carriers by regulating actin assembly and membrane remodelling at the trans-Golgi network. Nat Cell Biol. 2011;13(7):779-89.
- McIntosh BB, Ostap EM. Myosin-I molecular motors at a glance. J Cell Sci. 2016;129(14):2689-95.
- Pedersen RTA, Drubin DG. Type I myosins anchor actin assembly to the plasma membrane during clathrin-mediated endocytosis. J Cell Biol. 2019;218(4):1138-47.
- Barger SR, et al. Membrane-cytoskeletal crosstalk mediated by myosin-I regulates adhesion turnover during phagocytosis. Nat Commun. 2019;10(1):1249.
- Manenschijn HE, et al. Type-I myosins promote actin polymerization to drive membrane bending in endocytosis. eLife. 2019;8.
- Smith SL, et al. Class-I myosin responds to changes in membrane tension during clathrin-mediated endocytosis in human induced pluripotent stem cells. Proc Natl Acad Sci U S A. 2026;123(9):e2532817123.
- Loisel TP, Boujemaa R, Pantaloni D, Carlier MF. Reconstitution of actin-based motility of Listeria and Shigella using pure proteins. Nature. 1999;401(6753):613-6.
- Akin O, Mullins RD. Capping protein increases the rate of actin-based motility by promoting filament nucleation by the Arp2/3 complex. Cell. 2008;133(5):841-51.
- Boujemaa-Paterski R, et al. Directed actin assembly and motility. Methods Enzymol. 2014;540:283-300.
- Sykes C, Plastino J. Reconstitution of actin-based motility with commercially available proteins. J Vis Exp. 2022;(188).
- Xu M, et al. Myosin-I synergizes with Arp2/3 complex to enhance the pushing forces of branched actin networks. Sci Adv. 2024;10(37):eado5788.
- Kawska A, et al. How actin network dynamics control the onset of actin-based motility. Proc Natl Acad Sci U S A. 2012;109(36):14440-5.
- Cameron LA, Footer MJ, van Oudenaarden A, Theriot JA. Motility of ActA protein-coated microspheres driven by actin polymerization. Proc Natl Acad Sci U S A. 1999;96(9):4908-13.
- Bernheim-Groswasser A, et al. The dynamics of actin-based motility depend on surface parameters. Nature. 2002;417(6886):308-11.
- van der Gucht J, Paluch E, Plastino J, Sykes C. Stress release drives symmetry breaking for actin-based movement. Proc Natl Acad Sci U S A. 2005;102(22):7847-52.
- Achard V, et al. A "primer"-based mechanism underlies branched actin filament network formation and motility. Curr Biol. 2010;20(5):423-8.
- Noireaux V, et al. Growing an actin gel on spherical surfaces. Biophys J. 2000;78(3):1643-54.
- Theriot JA, Mitchison TJ, Tilney LG, Portnoy DA. The rate of actin-based motility of intracellular Listeria monocytogenes equals the rate of actin polymerization. Nature. 1992;357(6375):257-60.
- Bieling P, et al. WH2 and proline-rich domains of WASP-family proteins collaborate to accelerate actin filament elongation. EMBO J. 2018;37(1):102-21.
- Funk J, et al. A barbed end interference mechanism reveals how capping protein promotes nucleation in branched actin networks. Nat Commun. 2021;12(1):5329.
- Gautreau AM, Fregoso FE, Simanov G, Dominguez R. Nucleation, stabilization, and disassembly of branched actin networks. Trends Cell Biol. 2022;32(5):421-32.
- Nakamura F, Osborn E, Janmey PA, Stossel TP. Comparison of filamin A-induced cross-linking and Arp2/3 complex-mediated branching on the mechanics of actin filaments. J Biol Chem. 2002;277(11):9148-54.
- Colin A, et al. Friction patterns guide actin network contraction. Proc Natl Acad Sci U S A. 2023;120(39):e2300416120.
- Colin A, et al. Recycling of the actin monomer pool limits the lifetime of network turnover. EMBO J. 2023;42(9):e112717.
- Suarez C, et al. Reconstitution of the transition from a lamellipodia- to filopodia-like actin network with purified proteins. Eur J Cell Biol. 2023;102(4):151367.
- Pollard LW, Boczkowska M, Dominguez R, Ostap EM. Myosin-1C differentially displaces tropomyosin isoforms altering their inhibition of motility. J Biol Chem. 2024;300(8):107539.
- Thompson CP, et al. Non-muscle tropomyosins inhibit myosin-19 and dynamically localize to mitochondrially associated actin filaments. J Biol Chem. 2026;302(5):111377.
- Bussonnier M, et al. Mechanical detection of a long-range actin network emanating from a biomimetic cortex. Biophys J. 2014;107(4):854-62.
- Paluch E, van der Gucht J, Joanny JF, Sykes C. Deformations in actin comets from rocketing beads. Biophys J. 2006;91(8):3113-22.
- Lewis JH, Lin T, Hokanson DE, Ostap EM. Temperature dependence of nucleotide association and kinetic characterization of Myo1b. Biochemistry. 2006;45(38):11589-97.
- Baez-Cruz FA, Ostap EM. Drosophila class-I myosins that can impact left-right asymmetry have distinct ATPase kinetics. J Biol Chem. 2023;299(8):104961.
- Lin T, Tang N, Ostap EM. Biochemical and motile properties of Myo1b splice isoforms. J Biol Chem. 2005;280(50):41562-7.
- Lebreton G, et al. Molecular to organismal chirality is induced by the conserved myosin 1D. Science. 2018;362(6417):949-52.
- Spudich JA, Watt S. The regulation of rabbit skeletal muscle contraction. I. Biochemical studies of the interaction of the tropomyosin-troponin complex with actin and the proteolytic fragments of myosin. J Biol Chem. 1971;246(15):4866-71.
- Boczkowska M, et al. X-ray scattering study of activated Arp2/3 complex with bound actin-WCA. Structure. 2008;16(5):695-704.
- Rao JN, Madasu Y, Dominguez R. Mechanism of actin filament pointed-end capping by tropomodulin. Science. 2014;345(6195):463-7.
- Putkey JA, Slaughter GR, Means AR. Bacterial expression and characterization of proteins derived from the chicken calmodulin cDNA and a calmodulin processed gene. J Biol Chem. 1985;260(8):4704-12.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Greenberg MJ, Ostap EM. Regulation and control of myosin-I by the motor and light chain-binding domains. Trends Cell Biol. 2013;23(2):81-9.
- Lewis JH, et al. Calcium regulation of myosin-I tension sensing. Biophys J. 2012;102(12):2799-807.
- Manceva S, et al. Calcium regulation of calmodulin binding to and dissociation from the Myo1c regulatory domain. Biochemistry. 2007;46(42):11718-26.
- Mullins RD, Bieling P, Fletcher DA. From solution to surface to filament: actin flux into branched networks. Biophys Rev. 2018;10(6):1537-51.
- Mooren OL, et al. Reconstitution of Arp2/3-nucleated actin assembly with proteins CP, V-1, and CARMIL. Curr Biol. 2024;34(22):5173-86.e4.
- Pollard LW, et al. Genetically inspired in vitro reconstitution of Saccharomyces cerevisiae actin cables from seven purified proteins. Mol Biol Cell. 2020;31(5):335-47.
- Marcy Y, Prost J, Carlier MF, Sykes C. Forces generated during actin-based propulsion: a direct measurement by micromanipulation. Proc Natl Acad Sci U S A. 2004;101(16):5992-7.
- Dayel MJ, et al. In silico reconstitution of actin-based symmetry breaking and motility. PLoS Biol. 2009;7(9):e1000201.
- Hammer JA 3rd, Sellers JR. Walking to work: roles for class V myosins as cargo transporters. Nat Rev Mol Cell Biol. 2011;13(1):13-26.
- Buss F, Kendrick-Jones J. How are the cellular functions of myosin VI regulated within the cell. Biochem Biophys Res Commun. 2008;369(1):165-75.
- Spudich JA, Sivaramakrishnan S. Myosin VI: an innovative motor that challenged the swinging lever arm hypothesis. Nat Rev Mol Cell Biol. 2010;11(2):128-37.
- Self T, et al. Shaker-1 mutations reveal roles for myosin VIIA in both development and function of cochlear hair cells. Development. 1998;125(4):557-66.
- Crawley SW, et al. Intestinal brush border assembly driven by protocadherin-based intermicrovillar adhesion. Cell. 2014;157(2):433-46.
- Houdusse A, Titus MA. The many roles of myosins in filopodia, microvilli and stereocilia. Curr Biol. 2021;31(10):R586-R602.
- Bohil AB, Robertson BW, Cheney RE. Myosin-X is a molecular motor that functions in filopodia formation. Proc Natl Acad Sci U S A. 2006;103(33):12411-6.
- Fitz GN, et al. Protrusion growth driven by myosin-generated force. Dev Cell. 2023;58(1):18-33.
- Quintero OA, et al. Human Myo19 is a novel myosin that associates with mitochondria. Curr Biol. 2009;19(23):2008-13.
- Zimmet A, et al. Cryo-EM structure of NPF-bound human Arp2/3 complex and activation mechanism. Sci Adv. 2020;6(23):eaaz7651.
- Giardini PA, Fletcher DA, Theriot JA. Compression forces generated by actin comet tails on lipid vesicles. Proc Natl Acad Sci U S A. 2003;100(11):6493-8.
- Upadhyaya A, Chabot JR, Andreeva A, Samadani A, van Oudenaarden A. Probing polymerization forces by using actin-propelled lipid vesicles. Proc Natl Acad Sci U S A. 2003;100(8):4521-6.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında