Bu protokol, nohutla ilişkili rizobiyalarda fonksiyonel genomik çalışmaları yürütmek amacıyla, homoloji yönlendirmeli onarım ve GFP tabanlı tarama kullanarak Mesorhizobium ciceri'de nodC lokusunun CRISPR-Cas9 aracılı bozulmasını anlatmaktadır.
Yöntem makalesi
Nohut Simbiyoz Çalışmaları İçin nodC Kesintisi Yoluyla Mesorhizobium ciceri'de CRISPR-Cas9 Genom Düzenleme
* These authors contributed equally
Bu makalede
Özet
Özet
Mesorhizobium ciceri, nohutun (Cicer arietinum) azot sabitleyen bir simbiyontu olup, zahmetli olan ve genellikle istenmeyen seçilim belirteçleri bırakan geleneksel homolog rekombinasyon yaklaşımlarıyla genetik olarak manipüle edilmesi zor bir organizma olmaya devam etmektedir. Bu protokolde, M. ciceri için uyarlanmış, geniş konak yelpazesine sahip bir Düzenli Aralıklı Kısa Palindromik Tekrarlar (CRISPR)-ilişkili protein 9 (Cas9) sistemi kullanan kolaylaştırılmış bir genom düzenleme stratejisini tanımlıyoruz. Bu yöntemin etkinliğini, simbiyotik moleküler iletişimde yer alan temel sinyal molekülleri olan Nod faktörlerindeki kitin omurga sentezi için gerekli olan N-asetilglukozaminiltransferazı kodlayan nodC genini hedefleyerek kanıtlıyoruz. Bu protokol, tek kılavuz RNA'ların (sgRNA'ların) sistematik tasarımını ve homoloji yönlendirmeli onarım (HDR) şablonunun oluşturulmasını detaylandırmaktadır. HDR şablonu, nodC kesim bölgesini çevreleyen bir yeşil floresan protein (GFP) raporerinin bölgeye özgü entegrasyonunu kolaylaştırmak için tasarlanmıştır. Cas9/sgRNA/HDR konstrüktünün biparental çiftleşme yoluyla aktarılmasının ardından, muhtemel mutantlar floresan tabanlı bir tarama yaklaşımı kullanılarak belirlenmiştir. Nodülasyon (nod) kaseti içindeki 1.3 kb'lık nodC lokusunun başarılı bir şekilde bozulması, başlangıçta mutant kolonilerdeki GFP ekspresyonunun floresan mikroskobu ile görüntülenmesiyle taranmıştır. Bozulma; restriksiyon sindirimi, genomik DNA'dan entegre kasetin amplifikasyonu ve Sanger dizileme ile daha fazla doğrulanmıştır. GFP ekspresyonu ek olarak ters transkripsiyon kantitatif polimeraz zincir reaksiyonu ile nicelleştirilmiştir. Mutasyonun fonksiyonel etkisini doğrulamak için nohut enfeksiyon deneyleri gerçekleştirilmiş ve ΔnodC M. ciceri ile inoküle edilen bitkilerde, yabani tip suşa kıyasla bozulmuş nodülasyon olduğu gösterilmiştir. Genel olarak bu protokol, Mesorhizobium türlerinde hassas gen bozma ve fonksiyonel genomik çalışmaları için verimli ve tekrarlanabilir bir çerçeve sunmaktadır.
Giriş
Başlangıçta prokaryotlarda adaptif bir bağışıklık mekanizması olarak tanımlanan Kümelenmiş Düzenli Aralıklı Kısa Palindromik Tekrarlar (CRISPR)-ilişkili protein 9 (Cas9) nükleaz sistemi, genom düzenleme için etkili ve güvenilir bir araca dönüştürülmüştür1,2. Sistem, Watson-Crick baz eşleşmesi yoluyla hedef DNA dizilerini belirlemek için sentetik bir kılavuz RNA (sgRNA) kullanır. sgRNA, protospacer adjacent motif (PAM) dizisi NGG'ye komşu genomik bölgeye tamamlayıcı 20 nükleotidden oluşur. Cas9, hedef dizi içinde belirlenen bir bölgede, genellikle PAM bölgesinin 3 baz çifti (bp) yukarısında çift zincirli bir kırık (DSB) oluşturur1. Oluşan DSB'ler, ya homolog olmayan uç birleşmesiyle ya da bir donör şablon kullanılarak homoloji yönlendirmeli onarım (HDR) yoluyla onarılabilir3,4. Bu strateji, bakterilerde gen bozma, knock-in ve knock-out yaklaşımları için yaygın olarak uygulanmıştır5,6,7,8. Bu protokolün temel amacı, geniş konak yelpazeli bir CRISPR-Cas9 sistemi kullanarak Mesorhizobium ciceri için verimli bir genom düzenleme yöntemi geliştirmektir.
M. ciceri, nohutun (Cicer arietinum) temel azot sabitleyici endosimbiyotu olarak işlev gören Gram-negatif bir toprak bakterisidir9. Bir suş olan M. ciceri CC1192, yüksek nodülasyon verimliliği sergilemektedir ve genomu dizilenmiştir10. Tarımsal önemine rağmen, Mesorhizobium türlerinin genetik manipülasyonu sınırlı kalmaya devam etmektedir. CRISPR tabanlı sistemler daha önce, Rhizobium etli'de CRISPR interferansı (CRISPRi)11, Sinorhizobium meliloti'de genom düzenleme12 ve S. meliloti'de baz düzenleme13 dahil olmak üzere diğer rizobiyalarda uygulanmıştır. Ancak, M. ciceri için güçlü bir genom düzenleme platformu rapor edilmemiştir. Geleneksel yaklaşımlar, emek yoğun olan, çok sayıda seçim aşaması gerektiren ve sıklıkla genomik izler olarak antibiyotik direnç markerları bırakan intihar plazmidi aracılı homolog rekombinasyona dayanmaktadır14.
Bu sınırlamaları gidermek için, başlangıçta Paenibacillus polymyxa için geliştirilen pCasPP vektör sistemi, M. ciceri'de kullanılmak üzere uyarlandı15. pCasPP çerçevesi, yüksek-GC aktinomisetler için kodon optimize edilmiş bir Streptococcus pyogenes Cas9 kullanır ve konstitütif gapdh promotörü altında sgRNA klonlamasının mavi-beyaz taraması için bir lacZ kaseti içerir8. Düzenleme vektörünü aktarmak için donör Escherichia coli suşu ile resipiyent Mesorhizobium suşu arasında biparental çiftleşme gerçekleştirildi16. Tarama verimliliğini artırmak amacıyla, başlangıçta Bradyrhizobium diazoefficiens için kodon optimize edilmiş olan yeşil floresan protein (GFP) varyantı bjGFP, HDR donör şablonuna dahil edildi16. Bu floresan tabanlı tarama stratejisi, bakteri ile nohut arasındaki simbiyotik sinyalleşmenin erken aşamaları için gerekli olan esansiyel nodC lokusunu hedeflemek için uygulandı17,18.
Bu protokol, rastgele kimyasal veya ultraviyole (UV) mutajenez yaklaşımlarına kesin ve verimli bir alternatif sunmaktadır. Validasyon deneylerinde, geri kazanılan kolonilerin %80'inden fazlası GFP floresansı göstermiş ve temsilci düzenlenmiş koloniler polimeraz zincir reaksiyonu (PCR) ve Sanger dizileme ile daha ileri düzeyde doğrulanmıştır. Elde edilen ΔnodC M. ciceri mutantları, simbiyotik sinyalizasyon ve konakçı-mikrop etkileşimlerini incelemek için faydalı bir kaynak sağlamaktadır. Genel olarak bu çerçeve, rizobiyum araştırma topluluğuna Mesorhizobium türlerinde fonksiyonel genomik çalışmaları için verimli ve ölçeklenebilir bir yaklaşım sunmaktadır.
Protokol
Bitki büyümesi, mikrobiyal inokülasyon ve genetiği değiştirilmiş bakterilerin kullanımıyla ilgili tüm deneysel protokoller, kurumsal kılavuzlar ve düzenlemelere uygun olarak yürütülmüştür. Bitki yetiştirme ve bakteriyel inokülasyonlar, kontrollü büyüme odası koşulları altında gerçekleştirilmiştir. Bu çalışmada kullanılan M. ciceri suşu, Biyogüvenlik Seviyesi 1 (BSL-1) mikroorganizma olarak sınıflandırılmıştır. Tüm deneyler, araziye salınım yapılmadan kapalı laboratuvar koşulları altında yürütüldüğü için, kurumsal biyogüvenlik politikaları gereğince resmi kurumsal biyogüvenlik onayı gerekmemiştir. Çalışma sırasında oluşan tüm biyolojik atıklar, bertaraf edilmeden önce otoklavlanmıştır.
1. Kompetan Hücre Hazırlama
Kimyasal olarak kompetan E. coli DH5α ve E. coli S17-1λpir hücreleri, Ek Dosya 1'de açıklanan prosedüre göre hazırlanmış ve valide edilmiştir.
2. Rehber RNA Tasarımı
- Kılavuz RNA'ların Tasarımı
- Benchling platformunu (https://benchling.com/) açın. Mevcut bir Benchling hesabıyla giriş yapın veya yeni bir hesap oluşturun.
- Yeni bir proje oluşturun ve CRISPR Kılavuz Tasarım Aracını (CRISPR Guide Design Tool) açın.
- Kılavuz RNA tasarımı için hedef DNA dizisinin tamamını yükleyin veya yapıştırın. “Single Guide” (Tekil Kılavuz) tasarım seçeneğini belirleyin ve kılavuz uzunluğunu 20 bp olarak ayarlayın.
- Mevcut seçenekler arasından genom referansını seçin. M. ciceri'yi hedefleyen kılavuz RNA tasarımı için referans genom olarak Bradyrhizobium diazoefficiens USDA 110'u seçin. Streptococcus pyogenes Cas9 (SpCas9) aktivitesi için gerekli olan protospacer adjacent motif (PAM) dizisi olarak NGG'yi kullanın.
- Tahmini hedef dışı (off-target) kesim frekanslarını hesaplamak için Hsu ve ark.19 algoritmasını kullanın. Referans genom arka planında spesifik olmayan kesimleri minimize etmek için ≥50'lik bir eşik skorunu koruyun.
- Tahmini hedef içi (on-target) verimlilik skorlarını hesaplamak için Doench-Root algoritmasını20 kullanın. Hedef lokusta öngörülen Cas9 kesim verimliliği uygun olan kılavuzları belirlemek için hedef seçim eşiğini ≥60 olarak ayarlayın.
- Aday kılavuz RNA listesini oluşturmak için “Finish” butonuna tıklayın.
- Kılavuz RNA'ların Seçimi
- Kılavuz RNA çıktı panelini açın.
- Translasyonel başlangıç kodonunun (ATG) 100 bp yakınında çift zincirli kırılma oluşturacağı öngörülen aday sgRNA'lara öncelik verin; bu, fonksiyonel olmayan bir protein üretme olasılığını artırır.
- Hedef dışı ve hedef içi skorları değerlendirin. İstenmeyen hedef dışı kesim riskini azaltmak için, biraz daha yüksek bir hedef içi skor yerine daha yüksek bir hedef dışı skora öncelik verin.
- Tüm seçim kriterlerini karşılayan bir veya iki aday tekil kılavuz RNA (sgRNA) seçin.
- gRNA Oligonükleotidlerinin Hazırlanması
- Seçilen kılavuz RNA'nın ters-tamamlayıcı (reverse-complement) dizisini oluşturun.
- Kılavuz RNA'nın 5′ ucuna 5′-ACGC dizisini ve ters-tamamlayıcı zincirin 5′ ucuna 5′-AAAC dizisini ekleyin.
- Her iki oligonükleotidi, 5′ fosforilasyonu ve PAGE saflaştırması ile 25 nmol sentez ölçeğinde sipariş edin.
- gRNA Oligonükleotidlerinin Tavlanması (Annealing)
- 7,15 g HEPES serbest asidini yaklaşık 800 mL distile suda çözerek 30 mM HEPES tamponu hazırlayın. Sodyum hidroksit kullanarak pH'ı 7,8'e ayarlayın ve final hacmi 1 L'ye tamamlayın.
- Her bir fosforile oligonükleotidi, nükleaz içermeyen suda 100 µM final konsantrasyona gelecek şekilde yeniden süspande edin. Her bir oligonükleotidden 5 µL'yi, steril bir mikro santrifüj tüpünde 90 µL 30 mM HEPES tamponu ile birleştirin.
- Kısaca vorteksleyin ve sıvıyı toplamak için santrifüj edin. Oligonükleotidleri, bir termosikletörde 95°C'de 5 dk inkübe ederek ve 0,1°C/s ramp hızıyla 4°C'ye soğutarak tavlayın.
- Tavlanan oligonükleotidleri nükleaz içermeyen su ile 10 kat seyreltin.
- gRNA'nın pCasPP Vektörüne Montajı
- Daha önce Rütering ve ark.15 tarafından tanımlanan pCasPP vektörünü temin edin.
- Plazmit dizisi Jochen Schmid tarafından sağlanmış olup, bu çalışmada kullanılan konstrükt Dr. Syed Shams Yazdani (ICGEB) aracılığıyla elde edilmiştir.
- 100 ng pCasPP vektörü, 0,3 µL tavlanmış oligonükleotid inserti, 2 µL 10× T4 DNA ligaz tamponu, 1 µL T4 DNA ligaz, 1 µL BbsI restriksiyon enzimi ve nükleaz içermeyen su ile final hacmi 20 µL olacak şekilde bir Golden Gate reaksiyonu kurun.
- İnsert yerine nükleaz içermeyen su koyarak bir negatif kontrol reaksiyonu hazırlayın.
- Reaksiyonları nazikçe karıştırın ve kısaca santrifüj edin.
- Golden Gate Montaj Döngü Koşulları
- Reaksiyon tüplerini termosikletöre yerleştirin. 37°C'de 10 dk ve ardından 16°C'de 10 dk süren dokuz döngü gerçekleştirin.
- Reaksiyonları 50°C'de 5 dk ve ardından 65°C'de 20 dk inkübe edin. Reaksiyonları kullanıma kadar 4°C'de bekletin.
- Montaj Reaksiyonlarının Transformasyonu
- 50 µL kompetan Escherichia coli DH5α hücrelerini buz üzerinde 10–15 dk çözdürün.
- Her bir Golden Gate montaj reaksiyonundan 3 µL'yi kompetan hücrelere ekleyin. Negatif kontrol reaksiyonunu paralel olarak işleyin. Karışımları buz üzerinde 30 dk inkübe edin.
- Hücrelere 42°C'de 45 s boyunca ısı şoku uygulayın ve tüpleri hemen 2 dk boyunca buza geri döndürün. 950 µL Katabolit represyonlu Süper Optimal besiyeri (SOC) ekleyin.
- İçeriğinde %0,5 maya özütü, %2 tryptone, 10 mM NaCl, 2,5 mM KCl, 10 mM MgCl₂, 10 mM MgSO₄ ve 20 mM glukoz bulunan SOC besiyeri hazırlayın. Besiyerini aseptik koşullar altında 0,4 µm şırınga filtresi kullanarak filtre-sterilize edin.
- Kültürleri 37°C'de ve 180 rpm'de 1 saat inkübe edin.
- Pozitif Transformantların Seçimi
- 50 µg/mL neomisin, 0,2 mM izopropil β-D-1-tiyogalaktopiranozit (IPTG) ve 32 mg/L 5-bromo-4-kloro-3-indolil β-D-galaktopiranozit (X-gal) ile desteklenmiş LB agar plakları hazırlayın. Recovery kültürünün 100 µL'sini seçici plakalara ekleyin. Plakaları 37°C'de 12–16 saat inkübe edin.
- Beyaz kolonları seçin ve mavi kolonları atın. Negatif kontrol plakasının beşten az koloni içerdiğini doğrulayın.
- Pozitif Klonların Taranması ve Genişletilmesi
- Üç ila dört bağımsız beyaz kolonu taze seçici LB agar plaklarına ekleyin.
- Plakaları 37°C'de 12–16 saat inkübe edin. Münferit kolonları 50 µg/mL neomisin ile desteklenmiş 10 mL LB besiyerine inoküle edin.
- Her bir kılavuz RNA konstrüktünü sonraki iş akışı boyunca bağımsız olarak işleyin.
- pCasPP-gRNA Konstrüktlerinin Doğrulanması
- Bakteriyel kültürleri santrifüjle hasat edin. Bir silika kolon plazmit saflaştırma kiti kullanarak plazmit DNA'sını izole edin.
- İzole edilen plazmit DNA'sını XbaI ve EcoRI ile uygun reaksiyon tamponunda 37°C'de 1 saat boyunca digeste edin.
- Digeston ürünlerini, final konsantrasyonu 0,5 µg/mL etidyum bromür içeren 1× Tris-asetat-EDTA (TAE) tamponunda hazırlanmış %1'lik agaroz jelde ayırın.
- Boya önü jel uzunluğunun yaklaşık %70–80'ini kat edene kadar jeli 90–110 V'da çalıştırın. DNA fragmanlarını bir UV transilüminatör kullanarak görselleştirin.
- 1.280 bp'lik bir fragman tespit ederek pozitif klonları doğrulayın ve 1.630 bp'lik bir fragman tespit ederek boş vektör kontrollerini belirleyin. Boş pCasPP vektörü yaklaşık 9.663 bp'dir ve bir lacZ geni içerir; 24 bp'lik gRNA oligonükleotidinin eklenmesi lacZ fragmanını kaldırarak daha küçük bir gRNA içeren pCasPP konstrüktü oluşturur. lacZ bölgesini çevreleyen XbaI ve EcoRI restriksiyon bölgeleri, gRNA klonlamasının tanısal doğrulaması için kullanılır.
- Gliserol Stoklarının Hazırlanması
- Doğrulanmış bir pozitif klonu seçici LB besiyerinde büyütün.
- 700 µL log-faz kültürü ile 300 µL steril %50 gliserolü karıştırarak bir gliserol stoğu hazırlayın. Karışımı steril kriyoviyallere aktarın. Gliserol stoklarını −80°C'de saklayın.
NOT: Tekrarlanan dondurma-çözme döngülerinden kaçının. Plazmit stabilitesini ve bakteriyel canlılığı korumak için birden fazla alikvot hazırlayın. Tamamlanan Golden Gate montaj reaksiyonu, transformasyondan önce gece boyunca 4°C'de veya 1–2 hafta boyunca −20°C'de saklanabilir.
3. Homoloji Yönlendirmeli Onarım Şablonunun Montajı
- Yeşil floresan protein (GFP) İnsertinin Hazırlanması
- Floresan rapor kaseti içeren pRJPaph-bjGFP plazmidini temin edin16 (Tablo 1)10,15,16,21,22,23. Plazmid Prof. Hans-Martin Fischer (ETH Zürih, İsviçre) tarafından sağlanmıştır ve Addgene üzerinden temin edilebilir (Plazmid #67032).
- pRJPaph-bjGFP'deki gfp kasetini, Ek Dosya 2'de (Adım 3.1) açıklandığı gibi SacI ve KpnI restriksiyon sindirimi ile kesin. pRJPaph-bjGFP içindeki gfp dizisi, Bradyrhizobium diazoefficiens için kodon optimizasyonu yapılmış sentetik bir bjGFP genidir.
- Beklenen 1081 bp'lik gfp fragmanını saflaştırın.
- pUC18-gfp'nin Oluşturulması
- pUC18 iskeletini temin edin (Addgene plazmid #50004)21.
- pUC18'i, Ek Dosya 2'de (Adım 3.2) açıklandığı gibi SacI ve KpnI kullanarak lineerize edin.
- Saflaştırılmış gfp fragmanını, Ek Dosya 2'de (Adım 3.2) açıklandığı gibi lineerize edilmiş pUC18 vektörüne ligasyonu gerçekleştirin.
- Yetkin E. coli DH5α hücrelerini, Adım 2.7'de açıklanan transformasyon prosedürünü kullanarak transform edin; Golden Gate montaj reaksiyonu yerine Adım 3.2.3'te oluşturulan ligasyon karışımını kullanın.
- Pozitif transformantları seçin ve Ek Dosya 2'de (Adım 3.2) açıklandığı gibi koloni polimeraz zincir reaksiyonu (PCR) ile gfp insersiyonunu doğrulayın.
- Homoloji Kollarının Amplifikasyonu
- M. ciceri genomik DNA'sından yaklaşık 400–500 bp boyutunda yukarı akış (UHA) ve aşağı akış (DHA) homoloji kollarını amplifiye etmek için primerler tasarlayın (Tablo 2).
- UHA primerlerine SacI/EcoRI restriksiyon bölgelerini ve DHA primerlerine XbaI/KpnI restriksiyon bölgelerini ekleyin. UHA amplifikasyonu için F_nodC_Up_EcoRI ve R_nodC_Up_SacI primerlerini, DHA amplifikasyonu için ise F_nodCdown_KpnI ve R_nodCdown_XbaI primerlerini kullanın (Tablo 2).
- Weerakkody ve ark.25 yöntemine göre M. ciceri genomik DNA'sını izole edin.
- UHA ve DHA fragmanlarını, Ek Dosya 2'de (Adım 3.3) açıklandığı gibi amplifiye edin ve saflaştırın.
- pUC18-UHA-gfp'nin Oluşturulması
- UHA fragmanını, Ek Dosya 2'de (Adım 3.4) açıklandığı gibi EcoRI ve SacI kullanarak pUC18-gfp'ye klonlayın.
- Plazmid montajının doğruluğunu XbaI ve KpnI ile restriksiyon sindirimi yaparak onaylayın. Başarılı bir montaj, yaklaşık 500 ve 3725 bp boyutunda fragmanlar oluşturmalıdır.
- Doğrulanmış tek bir klon ile işleme devam edin.
- pUC18-UHA-gfp-DHA'nın Oluşturulması
- DHA fragmanını, Ek Dosya 2'de (Adım 3.5) açıklandığı gibi KpnI ve XbaI kullanarak pUC18-UHA-gfp'ye klonlayın.
- Montajın doğruluğunu SacI ve EcoRI ile restriksiyon sindirimi yaparak onaylayın. Başarılı bir montaj, yaklaşık 400 ve 4271 bp boyutunda fragmanlar oluşturmalıdır.
- Homoloji Yönlendirmeli Onarım (HDR) kaset dizisinin büyük çoğunluğunu kapsayan F_nodC_Up_EcoRI, BjGFP_BP_F1 ve R_nodCdown_XbaI (Tablo 2) primerlerini kullanarak 5–6 aday klonu Sanger dizileme ile doğrulayın.
- Final HDR Şablonunun Amplifikasyonu ve Saflaştırılması
- Tam HDR kasetini F_FL_nodCgfp_XbaI ve R_nodCdown_XbaI (Tablo 2) primerlerini kullanarak amplifiye edin.
- Beklenen 2012 bp'lik HDR fragmanını saflaştırın ve saflaştırılmış PCR ürününü, Ek Dosya 2'de (Adım 3.6) açıklandığı gibi XbaI ile sindirin.
- pCasPP-gRNA Vektörlerinin Hazırlanması
- Adım 2'de oluşturulan pCasPP-gRNA1 ve pCasPP-gRNA2 plazmidlerini geri alın.
- Plazmidleri XbaI ile lineerize edin ve vektör iskeletini Ek Dosya 2'de (Adım 3.7) açıklandığı gibi defosforile edin.
- HDR Şablonunun pCasPP-gRNA Vektörlerine Klonlanması
- HDR kasetini, Ek Dosya 2'de (Adım 3.8) açıklandığı gibi XbaI ile lineerize edilmiş pCasPP-gRNA1 veya pCasPP-gRNA2'ye ligasyonu gerçekleştirin.
- Yetkin E. coli DH5α hücrelerini transform edin ve transformantları 50 µg/mL neomisin içeren LB agarda seçin.
- HDR İçeren Klonların Taranması
- Transformantları, standart bir GFP filtre setine (eksitasyon 470–488 nm; emisyon 507–510 nm) sahip bir floresan stereomikroskop kullanarak GFP floresansı açısından tarayın.
- Kolonileri, düzenlenmemiş negatif kontrol kolonilerinde gözlemlenen zayıf otofloresansı açıkça aşan, belirgin ve tekdüze yeşil floresans varlığına göre GFP-pozitif olarak sınıflandırın.
- GFP-pozitif klonları çoğaltın ve plazmid DNA'sını izole edin.
- HDR Vektör Montajının Doğrulanması
- HDR insersiyonunu XbaI restriksiyon sindirimi ile onaylayın.
- Başarılı montajı, beklenen 2012 bp'lik HDR fragmanının yaklaşık 9,300 bp'lik pCasPP-gRNA vektör iskeleti ile birlikte salınmasıyla doğrulayın.
NOT: Restriksiyon enzimlerinin ve fosfatazın ısı ile inaktivasyonunun ardından, reaksiyon karışımları gece boyunca 4°C'de veya 1 aya kadar −20°C'de saklanabilir. Onaylanmış plazmid konstrüktlarını uzun süreli koruma için −20°C'de saklayın.
| Suş veya plazmit | Açıklama | Referans | ||||
| Mesorhizobium ciceri CC1192 | CRISPR-Cas9 genom düzenleme ve nohut nodülasyon analizlerinde kullanılan alıcı suş | Haskett ve ark.10 | ||||
| pCasPP | Kılavuz RNA klonlaması ve HDR şablonu iletimi için kullanılan CRISPR-Cas9 genom düzenleme vektörü | Rütering ve ark.15 | ||||
| pRJPaph-bjGFP | GFP kasetinin kaynağı olarak kullanılan GFP raporlayıcı plazmit (Addgene plazmidi #67032) | Ledermann ve ark.16 | ||||
| pUC18 | HDR şablon montajı için kullanılan genel klonlama vektörü (Addgene plazmid #50004) | Norrander ve ark.21 | ||||
| Escherichia coli S17-1λpir | Biparental konjugasyon için kullanılan donör suş | Simon ve ark.22 | ||||
| Escherichia coli DH5α | Plazmit çoğaltımı için kullanılan klonlama konağı | Hanahan ve ark.23 | ||||
Tablo 1: Bu çalışmada kullanılan bakteriyel suşlar ve plazmidler. Bu tablo; plazmid propagasyonu, CRISPR-Cas9 aracılı genom düzenleme, homoloji yönlendirmeli onarım (HDR) şablon montajı, biparental çiftleşme ve Mesorhizobium ciceri CC1192'nin floresan işaretlemesi için kullanılan bakteriyel suşları ve plazmidleri listelemektedir.
| Kategori | Ad | Dizilim (5′  3′) veya açıklama |
| Bakteriyel suş | Escherichia coli DH5α | Klonlama konakçı suşu |
| Bakteriyel suş | Escherichia coli S17-1λpir | Biparental çiftleşme için donör suş |
| Klonlama vektörü | pUC18 | Klonlama temel vektörü |
| CRISPR vektörü | pCasPP | Geniş konakçı aralıklı CRISPR-Cas9 vektörü |
| Raporlayıcı plazmid | pRJPaph-bjGFP | GFP raporlayıcı plazmidi |
| Primer | F_guide1_BbsI | pACGCTGTTTACAGAGGCATGCAAG |
| Primer | R_guide1_BbsI | pAAACCTTGCATGCCTCTGTAAACA |
| Primer | F_guide2_BbsI | pACGCGCTTGTTCGGATCCGACCGT |
| Primer | R_guide2_BbsI | pAAACACGGTCGGATCCGAACAAGC |
| Primer | F_nodC_Up_EcoRI | AAAGAATTCCTCATTGCAAGCCAGCAGT |
| Primer | R_nodC_Up_SacI | AAAGAGCTCCGGAAAGCTTGTTTCGGATCC |
| Primer | F_nodCdown_KpnI | AAAGGTACCTCGAGAGCACCGCATAAGAC |
| Primer | R_nodCdown_XbaI | AATTCTAGATGGTTCGGTACTTTCGTGCA |
| Primer | F_FL_nodCgfp_XbaI | AAATTCTAGACTCATTGCAAGCCAGCCAGT |
| Primer | BjGFP_BP_F1 | GAAGTTCATCTGCACCACCG |
| Primer | BjGFP_BP_R1 | GTCCTTGAACGAGATGGTGC |
| Primer | BjGFP_BP_F2 | CCAACTTCAAGATCCGCCAC |
| Primer | GFP_R | CCAACTTCAAGATCCGCCAC |
| Primer | BjGFP_BP_R2 | CTTGTACAGCTCGTCCATGC |
| Primer | 16S_F1 | ATCCTGGCTCAGAACGAACG |
| Primer | 16S_R1 | ATTCCCACGCGTTACTCACC |
| Primer | 16S_F2 | AGTCCGAGAGGGTGAGTGG |
| Primer | 16S_R2 | GTCAGTACCGAGCCAGTGAG |
| Primer | F1_nodC | CGATTTCCAGAACCGTCGTC |
| Primer | nodC_R | CGATTTCCAGAACCGTCGTC |
| Primer | R1_nodC | TCCCCTGCTACAATGAGGAC |
| Primer | F2_nodC | AGTGACTCCGCAATTCCAGA |
| Primer | R2_nodC | TGTCGGTAAAAGTGTTTCCC |
| Primer | F1_nodB | TGGTTCGGTACTTTCGTGCA |
| Primer | R1_nodB | AGTCGCGTGGATCAATGGAC |
| Primer | F1_nodA | TGATCGTCGCTGAATTGGGC |
| Primer | R1_nodA | CAACTGATGGAGCACTGGGT |
| Primer | F1_nodD | TGGCCTTAAGAGACGTGTCG |
| Primer | R1_nodD | AAATGCCTGACCAGCCGTAA |
Tablo 2: Bu çalışmada kullanılan bakteriyel suşlar, plazmidler ve oligonükleotid primerler. Bu tablo; tek kılavuz RNA (sgRNA) konstrüksiyonu, homoloji yönlendirmeli onarım (HDR) şablonu montajı, tanısal polimeraz zincir reaksiyonu (PCR), Sanger dizileme ve ters transkripsiyon kantitatif polimeraz zincir reaksiyonu (RT-qPCR) için kullanılan bakteriyel suşları, plazmidleri ve oligonükleotid primerleri listelemektedir. Primer dizileri 5′ 3′ yönünde sunulmuştur. Not: BjGFP_BP_F2 ve GFP_R aynı oligonükleotid dizisine atıfta bulunur, ancak farklı deneysel analizlerde kullanıldıkları için farklı primer adları altında listelenmişlerdir.
4. Plazmidin M. ciceri CC1192'ye Aktarımı için Biparental Çiftleştirme
- Donörün Transformasyonu E. coli Hücreler
- Dönüştür E. coli S17-1λpCasPP-gRNA1-HDR veya pCasPP-gRNA2-HDR konstrüktleri ile, ...'da açıklanan prosedüre uygun olarak pir hücrelerini Ek Dosya 3 (Adım 4.1).
- İçeren LB agarda transformantları seçin 50 µg/mL neomisin.
- Yaklaşık 488 nm'de eksitasyon ve yaklaşık 510–520 nm'de emisyon deteksiyonu kullanarak transformantları GFP floresansı açısından tarayın.
- Transforme edilmemiş kolonilerde bulunmayan, tekdüze ve belirgin yeşil floresans sergileyen kolonileri GFP-pozitif olarak sınıflandırın E. coli S17-1λAynı mikroskop ayarları altında incelendiğinde, pir kontrol kolonileri.
- Onaylanmış GFP-pozitif donör klonlarından gliserol stokları hazırlayın.
- Tohum ve Başlangıç Kültürlerinin Hazırlanması
- Donörü hazırlayın E. coli S17-1λpir ve alıcı M. ciceri şunlara göre başlangıç kültürleri Ek Dosya 3 (Adım 4.2).
- Başlangıç kültürlerini belirli bir OD değerine kadar büyütün₆₀₀ 0,3–0,4 arasında olup, yaklaşık 1 düzeyindeki tahmini hücre yoğunluğuna karşılık gelmektedir × 108 CFU/mL.
- Biparental Çiftleşme için Subkültürlerin Hazırlanması
- Donör ve resipiyent alt kültürlerini hazırlayın ve bunları şuna göre gerekli eksponansiyel büyüme fazına kadar büyütün: Ek Dosya 3 (Adım 4.3).
- 600 nm'de optik yoğunluğu ölçün (OD600) [belirtilen] optik yoğunluk ölçüm prosedürüne uygun olarak bir UV-görünür bölge spektrofotometresi kullanılarak Ek Dosya 1 (Adım 1.2.3).
- Biparental Çiftleşme Prosedürü
- ...'ya göre membran filtreli biparental çiftleşme gerçekleştirin Ek Dosya 3 (Adım 4.4).
- Çiftleşme süspansiyonundan dört alikotu steril bir... üzerine damlatın. 0.22 µm poliviniliden florür (PVDF) membran filtre (47 mm çap), lekelerin birbirine karışmasını önlemek için aralarında yeterli boşluk bırakılarak.
- Transkonjugantların Geri Kazanımı ve Seçimi
- Transkonjugantları geri kazanın ve şuna göre çift antibiyotikli seleksiyon uygulayın Ek Dosya 3 (Adım 4.5).
- Kalıntı plazmitleri uzaklaştırmak için transkonjugantları sadece karbenisilin içeren ortamda tekrar tekrar pasajlayın.
- Kolonilerin neomisin içeren ortamda büyüyememesi ve kromozomal olarak entegre edilmiş HDR kasetini korurken pCasPP omurgasının yokluğunu gösteren tanısal PCR ile plazmit temizlemeyi doğrulayın.
NOT: Entegre edilen modifikasyonun stabilitesini doğrulamak ve kalıntı episomal plazmitleri ortadan kaldırmak için ardışık pasajlama gereklidir.
- GFP-Pozitif Kolonilerin Taranması
- Saflaştırılmış transkonjugantları GFP floresansı açısından tarayın ve bunları yabanı tip ile karşılaştırın M. ciceri şuna göre kontroller Ek Dosya 3 (Adım 4.6).
- HDR-pozitif olduğu varsayılan suşlar olarak floresan kolonileri seçin.
- Vahşi tipte görülmeyen, tekdüze ve belirgin yeşil floresans gösteren kolonileri GFP-pozitif olarak sınıflandırın M. ciceri aynı mikroskop ayarları ve pozlama koşulları altındaki koloniler.
- Alt doğrulama aşamalarına geçmeden önce, GFP-pozitif kolonileri tanısal PCR ile doğrulayın.
- Onaylanmış kolonileri yeast mannitol (YM) agarında şu sıcaklıkta saklayın: 4°C kısa süreli muhafaza için veya −80°C'de %20–25 gliserol içeren gliserol stokları şeklinde80°C uzun süreli saklama için.
5. nodC Mutantlarının Doğrulanması
- nodC Lokusundaki GFP Entegrasyonunun Doğrulanması
- GFP eksprese eden tek bir M. ciceri kolonisini, 100 µg/mL carbenicillin ile desteklenmiş 10 mL maya mannitol besiyerine (YMB) inoküle edin24. Kültürü 28°C'de, 180 rpm karıştırma ile 20–24 saat inkübe edin.
- Bakteriyel hücreleri 25°C'de 8,000 × g ile 10 dakika santrifüj ederek hasat edin. Hücre peletini toplayın ve genomik DNA'yı Weerakkody et al.'a25 göre izole edin.
- Genomik DNA'yı kalıp olarak kullanarak tanısal PCR gerçekleştirin (Tablo 2). 5 µL 2× PCR Master Mix, 0,2 µM F1_nodB ve nodC_R primerleri veya F1_nodB ve gfp_R primerleri ile 50 ng genomik DNA içeren 10 µL'lik bir PCR reaksiyonu hazırlayın.
- Termosiklet cihazını; 95°C'de 5 dakika başlangıç denatürasyonu, ardından 35 döngü boyunca 95°C'de 1 dakika, 62°C'de 30 saniye ve 72°C'de 45 saniye ve son olarak 72°C'de 5 dakika final uzama aşaması şeklinde programlayın.
- PCR ürünlerini daha önce açıklanan şekilde %1 (w/v) agaroza jelde ayırın. F1_nodB/nodC_R kullanarak yabanı tipte (WT) yaklaşık 430 bp'lik bir ürün ve bozulmuş mutantta yaklaşık 1500 bp'lik bir ürün; F1_nodB/gfp_R kullanarak ise mutantta yaklaşık 1000 bp'lik bir ürün (WT'de ürün yok) tespit ederek GFP entegrasyonunu doğrulayın.
- PCR doğrulaması sırasında uygun kontrolleri ekleyin. Pozitif kontrol olarak hedef diziyi içeren plazmid DNA'yı ve negatif kontrol olarak nükleazsız su içeren bir kalıpsız kontrol (NTC) kullanın.
- Ters Transkripsiyon Kantitatif Polimeraz Zincir Reaksiyonu (RT-qPCR) ile GFP Ekspresyonunun Kantifikasyonu
- WT ve mutant M. ciceri kültürlerinden, üretici talimatlarına göre TRIzol reajanı kullanarak toplam RNA izole edin.
- Kontamine genomik DNA'yı uzaklaştırmak için RNA'yı üretici talimatlarına göre DNase I ile işlemden geçirin. DNA'nın tamamen uzaklaştırıldığını, qPCR sırasında bir ters transkriptazsız (−RT) kontrol kullanarak doğrulayın.
- Üretici talimatlarına göre, ticari olarak mevcut bir birinci zincir cDNA sentez kiti kullanarak 1 µg toplam RNA'dan birinci zincir cDNA sentezleyin. RNA, oligo(dT) primerleri, dNTP'ler, reaksiyon tamponu, RNase inhibitörü ve ters transkriptaz içeren 20 µL'lik bir reaksiyon hazırlayın.
- cDNA sentez reaksiyonunu 42°C'de 60 dakika inkübe edin, ardından 70°C'de 5 dakika ısı ile inaktivasyon yapın. cDNA'yı kullanıma kadar −20°C'de saklayın.
- RT-qPCR reaksiyonlarını teknik olarak üç tekrar halinde hazırlayın. 5 µL 2× SYBR Green Master Mix, GFP amplifikasyonu için 0,2 µM BjGFP_BP_F1 ve BjGFP_BP_R1 primerleri veya referans gen amplifikasyonu için 16S_F1 ve 16S_R1 primerleri (Tablo 2), 2 µL cDNA kalıbı (yaklaşık 20 ng) ve nükleazsız su içeren 10 µL'lik reaksiyonlar kurun.
- RT-qPCR'ı şu döngü koşullarında gerçekleştirin: 95°C'de 2 dakika başlangıç denatürasyonu, ardından 40 döngü boyunca 95°C'de 15 saniye ve 58°C'de 45 saniye, ardından 65°C'den 95°C'ye kadar erime eğrisi analizi.
- qRT-PCR'ı bir Bio-Rad CFX96 Real-Time PCR Tespit Sistemi kullanarak gerçekleştirin. Amplifikasyon grafiklerini, Ct değerlerini ve erime eğrilerini Bio-Rad CFX Manager yazılımı ile analiz edin.
- Göreceli gen ekspresyonunu 2−ΔΔCt yöntemiyle hesaplayın. Ekspresyonu 16S rRNA referans genine göre normalize edin ve kalibratör örnek olarak WT M. ciceri suşunu kullanın. Her biri teknik olarak üç tekrarla ölçülen üç biyolojik tekrarı analiz edin.
- Nodülasyon Potansiyelinin Değerlendirilmesi
- Bakteriyel İnokulumun Hazırlanması
- WT ve mutant suşların tek kolonilerini 100 µg/mL carbenicillin içeren seçici YMB'ye inoküle edin. Kültürleri 28°C'de, 180 rpm karıştırma ile 30–36 saat inkübe edin.
- Kültürleri taze seçici YMB'ye 1:100 oranında seyreltin ve bir UV–Görünür spektrofotometre kullanarak OD600 değerini ölçerek büyümeyi izleyin. Cihazı inoküle edilmemiş YMB ile sıfırlayın ve kültürler yaklaşık 1 × 10⁸ CFU/mL'ye karşılık gelen 0,3–0,4 OD600 değerine ulaşana kadar inkübasyona devam edin.
- Her bir bitkinin inokülasyonu için standartlaştırılmış bakteriyel süspansiyondan 3 mL kullanın.
- Nohut Bitkisi Enfeksiyon Deneyi
- C. arietinum BDG256 kültivarının18,24 tohumlarını ICAR–Hindistan Tarımsal Araştırma Enstitüsü'nden (IARI), Yeni Delhi, Hindistan'dan temin edin.
- Tohumları önce akan musluk suyu, ardından Milli-Q saflaştırılmış su ile iyice yıkayın. Tohumları %1 sodyum hipokloritte, çalkalayarak 5 dakika boyunca yüzey sterilizasyonuna tabi tutun ve steril saflaştırılmış su ile beş kez durulayın.
- Tohumları %0,1 Bavistin fungisiti ( %50 karbendazim ıslanabilir toz) ile oda sıcaklığında 2–3 saat boyunca işlemden geçirin. İşlem görmüş tohumları steril saflaştırılmış su ile iki kez yıkayın.
- Tohumları steril Petri kaplarında (110 mm × 40 mm) nemli steril filtre kağıtları üzerine yerleştirin, Parafilm ile kapatın ve 28°C ± 2°C'de karanlıkta 3 gün boyunca inkübe edin.
- Çimlenmiş fideleri tek tek steril kuma aktarın. Kumu kullanmadan önce 121°C ve 15 psi'da 20 dakika boyunca sterilize edin.
- 6,0 g CaSO₄, 1,0 g MgSO₄·7H₂O, 1,0 g KH₂PO₄, 1,5 g KCl, 14,3 mg H₃BO₃, 0,4 mg CuSO₄·5H₂O, 0,08 mg MnSO₄·4H₂O, 0,45 mg H₂MoO₄ ve 1,1 mg ZnSO₄·7H₂O'yu steril distile suda çözerek toplam hacmi 5 L'ye tamamlayıp azotsuz McKnight besin solüsyonunu hazırlayın.
- Fideleri, her saksıda dört bitki olacak şekilde steril kum içeren 10 cm çapındaki saksılarda büyütün. Her saksıyı haftada iki kez 20 mL azotsuz McKnight solüsyonu ile sulayın.
- Bitkileri 22°C ± 2°C (gündüz), 18°C ± 2°C (gece), %55–60 bağıl nem, 16 saat ışık/8 saat karanlık fotoperiyodu ve 200 µmol foton m⁻2 s⁻1 ışık şiddeti olan kontrollü koşullar altında tutun. Fideleri inokülasyondan önce 6–7 gün boyunca büyütün.
- Her bir fideye doğrudan 3 mL bakteriyel süspansiyon uygulayın. 3 mL steril YMB uygulayarak yalancı işlem görmüş (mock) kontrolleri oluşturun. Her işlem grubu için 16 biyolojik tekrar bitki kullanın.
- İnokülasyondan 20 gün sonra kökleri ve sürgünleri hasat edin. Nodülleri manuel olarak sayın ve hasattan hemen sonra taze biyokütleyi kaydedin.
- Dokuları, sabit ağırlığa ulaşana kadar 65°C'de kurutun. Sabit ağırlığı, 24 saatlik kurutma aralıklarıyla elde edilen ve farkı <0,01 g olan iki ardışık ölçüm olarak tanımlayın, ardından kuru biyokütleyi kaydedin.
- Sonuçları ortalama ± standart hata (SE) olarak ifade edin. GraphPad Prism versiyon 10.0 kullanarak tek yönlü ANOVA ve ardından Tukey'nin çoklu karşılaştırma testini gerçekleştirin ve P < 0,05 değerini istatistiksel olarak anlamlı kabul edin.
NOT: Tohum sterilizasyonu, çimlenme, inokülasyon ve bitki büyümesi boyunca steril koşulları koruyun.
UYARI: Sodyum hipoklorit ve fungisit solüsyonlarını; eldiven ve göz koruması dahil uygun kişisel koruyucu ekipman kullanarak taşıyın.
- Bakteriyel İnokulumun Hazırlanması
Sonuçlar
Bu protokolde, nodC lokusunun hedeflenmesi yoluyla CRISPR-Cas9 genom düzenlemesi M. ciceri CC1192 için uyarlanmıştır. Fonksiyon kaybını teşvik etmek amacıyla sgRNA'lar, nodC kodlama dizisinin 5′ proksimal bölgesini hedefleyecek şekilde tasarlanmış ve böylece kodlanan proteinin translasyonunu bozmak için başlangıç kodlama bölgesinde bir DSB oluşturulmuştur (Şekil 1A).
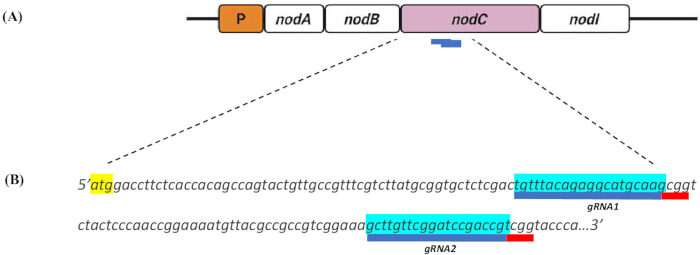
Şekil 1... hedefleyen tek kılavuz RNA'ların (sgRNA'lar) tasarımı nodC lokusunda Mesorhizobium ciceri. (A) Şematik gösterimi M. ciceri nodC CRISPR-Cas9 aracılı hedefleme için tasarlanan iki 20-bp'lik sgRNA'nın konumlarını gösteren lokus. sgRNA hedef bölgeleri mavi renkle gösterilmiştir. (B) ...hedefleyen sgRNA1 ve sgRNA2 nükleotid dizileri nodC lokus. Protospacer komşu motifi (PAM; 5′-NGG-3′) kırmızı ile belirtilmiştir ve nodC başlangıç kodonu (ATG) sarı ile vurgulanmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Bir 5' bölgesinin hemen yukarısında iki adet 20 bp'lik hedef dizi belirlenmiştir′-NGG-3′ PAM dizisi (Şekil 1B). Bu aday sgRNA'ların Hsu ve ark. tarafından geliştirilen algoritma kullanılarak in silico analizi.19 100'lük özgünlük skorları elde edilmiş olup, bu durum, belirlenen hedef bölge içinde anlamlı bir hedef dışı komplementerliğin tespit edilmediği ve yüksek öngörülen hedefleme özgünlüğüne işaret etmektedir M. ciceri genom. Seçilen sgRNA'ların öngörülen hedef üzeri verimlilik skorlarında küçük farklılıklar gözlemlenmiştir (Tablo 3), bu durum sonraki deneysel değerlendirme için kılavuz seçimini bilgilendirmiştir.
| Hedef konum (bp) | Zincir | sgRNA dizisi (5'′ 3′) | PAM | Özgüllük skoru | Verimlilik puanı | |
| 77 | + | TGTTTACAGAGGCATGCAAG | CGG | 100 | 43.58 | |
| 139 | + | GCTTGTTCGGATCCGACCGT | TGG | 99.7 | 47.63 | |
Tablo 3: Mesorhizobium ciceri'deki nodC geninin CRISPR-Cas9 aracılı düzenlemesi için tasarlanan aday tek kılavuz RNA'lar (sgRNA'lar).Aday sgRNA'lar, referans genom olarak Bradyrhizobium diazoefficiens USDA 110 kullanılarak Benchling CRISPR Kılavuz Tasarım Aracı ile tasarlanmıştır. Kılavuzlar, öngörülen özgünlük ve hedef üzerindeki etkinlik puanlarına göre sıralanmış ve nodC translasyonel başlangıç kodonuna yakın dizileri hedefleyen ve Streptococcus pyogenes Cas9 (SpCas9) için gerekli NGG protospacer komşu motifi (PAM) içerenler seçilmiştir.
Muhtemel mutantların HDR ve floresan tabanlı taramasını kolaylaştırmak için, pUC18 klonlama vektörü kullanılarak bir HDR kaseti oluşturuldu (Şekil 2). The gfp reporter kaseti, SacI ve KpnI restriksiyon sindirimi ile pRJPaph-bjGFP'den eksize edilmiş ve lineerize edilmiş pUC18 omurgasına ligasyonla eklenmiştir (Şekil 2A). ...-e/a dönüştürüldükten sonra E. colimuhtemel pozitif klonlar, mavi-beyaz tarama ile belirlendi. Şunların entegrasyonu gfp pUC18 omurgasına yapılan ekleme, gene özgü primerler kullanılarak gerçekleştirilen PCR amplifikasyonu ile daha ileri düzeyde doğrulanmış olup, pozitif klonlarda beklenen 500 bp'lik amplikon üretilmiştir (Şekil 2A).
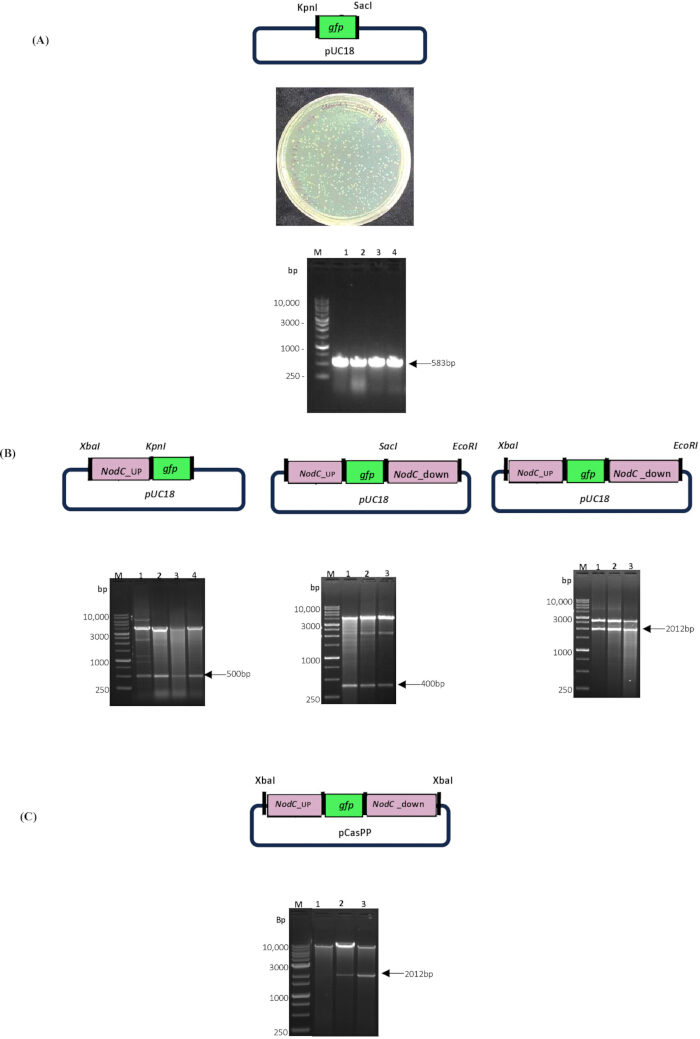
Şekil 2. nodC bozunumu için CRISPR-Cas9 homoloji yönlendirmeli onarım (HDR) sisteminin kurulumu. (A) pUC18-gfp ara plazmidinin kurulumu ve doğrulanması. Üst panel, pUC18 iskeletine yeşil floresan protein (gfp) kasetinin yerleştirilmesiyle oluşturulan pUC18-gfp plazmid haritasını göstermektedir. Orta panel, mavi-beyaz tarama sonrası temsili kolonileri göstermektedir. Alt panel, BjGFP_BP_F1 ve BjGFP_BP_R2 primer çifti kullanılarak yapılan koloni polimeraz zincir reaksiyonu (PCR) doğrulamasını göstermektedir. (B) HDR şablonunun pUC18 iskeletinde ardışık montajı. Plazmid haritaları ve restriksiyon sindirim analizleri; yukarı akış homoloji kolunun (UHA), aşağı akış homoloji kolunun (DHA) ve tam UHA-gfp-DHA HDR kasetinin yerleşimini doğrulamaktadır. (C) UHA-gfp-DHA HDR kasetinin pCasPP CRISPR-Cas9 vektörüne klonlanması ve doğrulanması. Üst panel nihai pCasPP-HDR plazmid haritasını, alt panel ise HDR kasetinin yerleşimini doğrulayan restriksiyon sindirimi göstermektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
HDR konstrüktü, gfp kasetini çevreleyen nodC homoloji kolları eklenerek monte edildi. Tahmini Cas9 kesim bölgesinin bitişiğine konumlandırılmış 500 bp'lik bir UHA ve 400 bp'lik bir DHA, restriksiyon sindirimi ve ligasyon yoluyla sırasıyla pUC18-gfp konstrüktüne klonlandı (Şekil 2B). UHA-gfp-DHA kasetinin montajı, beklenen 2012 bp'lik fragmanı veren restriksiyon sindirim analizi ile doğrulandı (Şekil 2B). Tamamlanmış HDR kaseti daha sonra geniş konak yelpazeli CRISPR vektörü pCasPP'ye alt klonlandı (Şekil 2C). Restriksiyon sindirim analizi, final konstrüktünün bütünlüğünü ve M. ciceri için genom düzenleme teslim vektörünün başarılı bir şekilde monte edildiğini doğruladı (Şekil 2C).
pCasPP-gRNA-HDR konstrüktünü M. ciceri hücresine aktarmak için donör E. coli S17-1λpir ile resipiyent M. ciceri suşu arasında biparental çiftleşme gerçekleştirildi (Şekil 3A). Şekil 3B, nod operon organizasyonunu ve HDR şablonu kullanılarak homolog rekombinasyon yoluyla nodC lokusunun gfp kaseti ile öngörülen yer değiştirmesini göstermektedir. Transkonjugant koloniler, biparental çiftleşmeyi takiben başlangıçta GFP floresan taraması ile tanımlandı (Şekil 3B ve 3C). Geri kazanılan kolonilerin %80'inden fazlası gRNA2 ile GFP floresansı gösterdi ve kolonilerin %65'inden fazlası gRNA1 girişini takiben floresans sergiledi (Şekil 3C). Sadece floresan taramanın, plazmit kaynaklı GFP ekspresyonunu başarılı genomik entegrasyondan ayırt edememesi nedeniyle, raporlayıcı kasetin lokusa özgü insersiyonunu doğrulamak için alt aşamalarda moleküler validasyon gerçekleştirildi.
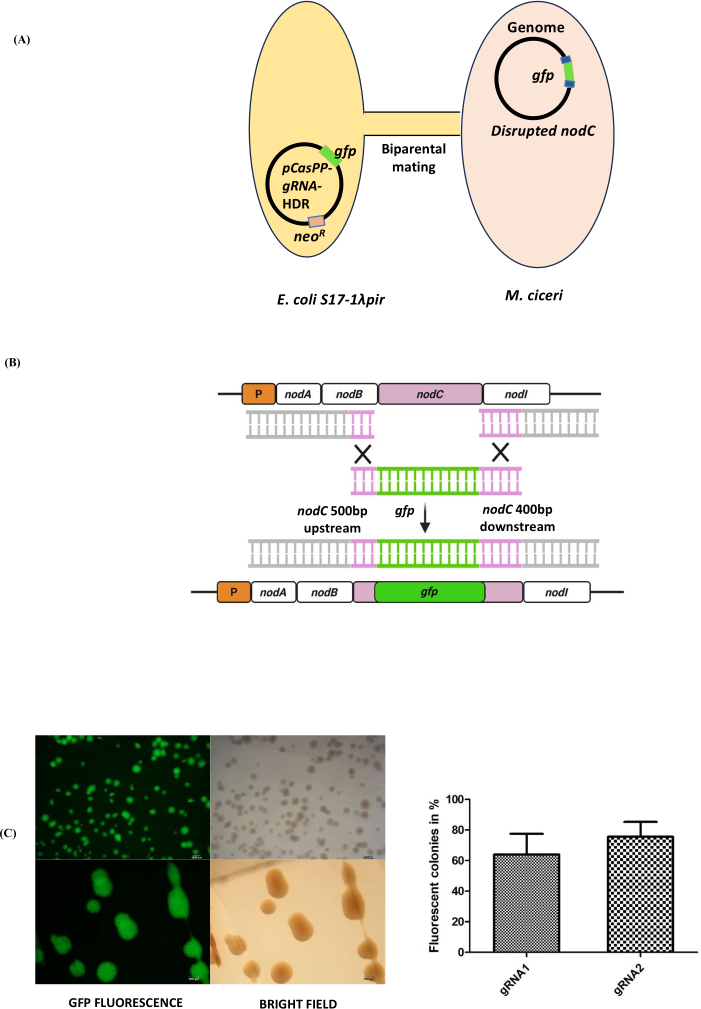
Şekil 3. Mesorhizobium ciceri'de CRISPR-Cas9 aracılı nodC lokusu bozulması. (A) pCasPP-gRNA-HDR konstrüktünün Escherichia coli S17-1λpir donör hücrelerinden M. ciceri resipiyent hücrelerine aktarımı için kullanılan biparental çiftleşmenin şematik gösterimi. (B) CRISPR-Cas9 kesimini takiben nodC lokusunun gfp kaseti ile homoloji yönlendirmeli onarım (HDR) aracılığıyla değiştirilmesini gösteren diyagram. HDR şablonu, gfp kasetini çevreleyen yaklaşık 500 bp yukarı akış ve 400 bp aşağı akış homoloji kolları içerir. (C) Transkonjugant M. ciceri kolonilerinin floresan tabanlı taraması. sgRNA1 veya sgRNA2 içeren konstrüktler kullanılarak yapılan biparental çiftleşmeyi takiben elde edilen floresan transkonjugantların yüzdesi ile birlikte GFP-pozitif kolonilerin temsili floresan ve parlak alan stereomikroskopi görüntüleri gösterilmektedir. Hata çubukları standart sapmayı temsil eder. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
gfp kasetinin nodC lokusuna entegrasyonunu doğrulamak için, temsili GFP-pozitif kolonlara PCR analizi uygulandı. nodB ve nodC bölgelerini kapsayan genomik bölgenin amplifikasyonu, düzenlenen klonlarda raporlayıcı kasetin entegrasyonu ile uyumlu olarak 1511 bp'lik bir fragman üretirken, yabani tip (WT) suş 430 bp'lik bir amplikon üretti (Şekil 4A). gfp-spesifik ve nodC-flank primerleri kullanılarak yapılan PCR amplifikasyonu, düzenlenen klonlarda belirgin bir 997 bp'lik fragman oluştururken, WT kontrolde herhangi bir amplifikasyon saptanmadı ve bu durum lokusa özgü insersiyonu destekledi. Raporlayıcı kasetin yönelimi Sanger sekanslama ile doğrulandı. Ek olarak, düzenlenen suşlardaki GFP ekspresyonu RT-qPCR ile değerlendirildi ve bu analiz, WT suşa kıyasla artmış GFP transkript birikimi olduğunu gösterdi (Şekil 4B). Ekspresyon değerleri, WT suş kontrol alınarak 2−ΔΔCt yöntemi ile hesaplandı ve referans 16s genine göre normalize edildi. Veriler, üç biyolojik tekrarlamanın ortalaması ± SD değerini temsil etmektedir (n = 3). İstatistiksel anlamlılık, tek yönlü ANOVA ve ardından WT kontrolüne karşı uygulanan Dunnett testi ile belirlendi.
Çalışmanın mevcut kısıtlılığı, temel rekombinasyon katsayısını belirlemek için boş-gRNA pCasPP-HDR gibi bir kontrol vektörünün bulunmamasıdır. Gelecekteki çalışmalar böyle bir kontrolü içermelidir.
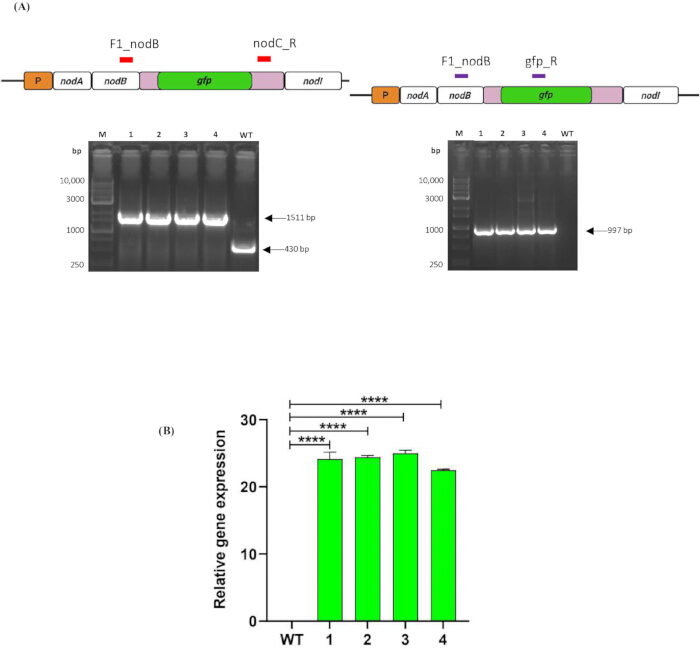
Şekil 4...'nın moleküler doğrulaması ΔnodC Mesorhizobium ciceri mutantlar. (A) PCR temelli doğrulaması nodC bozulma. Sol panel, F1_nodB ve nodC_R primer çifti kullanılarak yapılan amplifikasyonu göstermektedir. M şeridi, DNA merdiveni; 1–4 şeritleri, ΔM. ciceri nodC mutantlar; WT şeridi, vahşi tip M. ciceriSağ panel, F1_nodB ve gfp_R primer çifti kullanılarak yapılan amplifikasyonu göstermektedir. Şerit M, DNA merdiveni; şeritler 1–4, ΔM. ciceri nodC mutantlar; WT şeridi, yabanıl tip M. ciceriBeklenen amplikon boyutları belirtilmiştir. (B) ... içerisinde bağıl yeşil floresan protein (GFP) ekspresyonu ΔM. ciceri nodC ters transkripsiyon kantitatif polimeraz zincir reaksiyonu (RT-qPCR) ile belirlenen mutantlar. Gen ekspresyonu, şuna normalize edildi: M. ciceri 16S ribozomal RNA (16S rRNA) referans geni ve 2^− yöntemi kullanılarak vahşi tip (WT) kontrole göre göreceli olarak ifade edilenΔΔCt yöntemi. Hata çubukları standart sapmayı temsil etmektedir. İstatistiksel anlamlılık, WT kontrolüne göre belirlenmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
nodC bozulmasının biyolojik etkisi, nohut enfeksiyon deneyleri kullanılarak değerlendirilmiştir. WT M. ciceri ile inoküle edilen bitkiler görünür kök nodülleri oluştururken, ΔnodC M. ciceri ile inoküle edilen bitkilerde nodülasyonda belirgin bir azalma veya hiç nodül oluşmaması gözlemlenmiştir (Şekil 5A). İnoküle edilmemiş kontrol bitkilerinde nodül oluşmaması, steril deneysel koşulların korunduğunu desteklemiştir (Şekil 5A). Bitki büyüme parametrelerinin kantitatif analizi; kök uzunluğu, taze kök ağırlığı, kuru kök ağırlığı, sürgün uzunluğu, taze sürgün ağırlığı, kuru sürgün ağırlığı ve nodül sayısı dahil olmak üzere WT ve ΔnodC M. ciceri inoküle edilmiş bitkiler arasındaki farkları daha net bir şekilde ortaya koymuştur (Şekil 5B). WT inoküle edilen bitkiler, ΔnodC M. ciceri inoküle edilen ve inoküle edilmemiş kontrol bitkilerine kıyasla daha yüksek nodül sayıları ve gelişmiş büyüme ilişkili parametreler sergilemiştir. Bu bulgular, nodC ilişkili nodülasyon fonksiyonunun bozulmasıyla uyumludur ve bu CRISPR-Cas9 tabanlı iş akışının M. ciceri'deki fonksiyonel genomik çalışmaları için uygulanabilirliğini desteklemektedir. Uygulama grupları arasındaki farkları karşılaştırmak için kantitatif bitki fenotip verileri değerlendirilmiştir. Analize toplam 90 biyolojik tekerrür dahil edilmiştir (her uygulama grubu için n = 30 bitki). Veriler ortalama ± SD olarak sunulmuştur. İstatistiksel anlamlılık, tek yönlü varyans analizi (ANOVA) ve ardından Tukey post hoc çoklu karşılaştırma testi kullanılarak değerlendirilmiştir. Farklar P < 0.05 değerinde istatistiksel olarak anlamlı kabul edilmiştir.
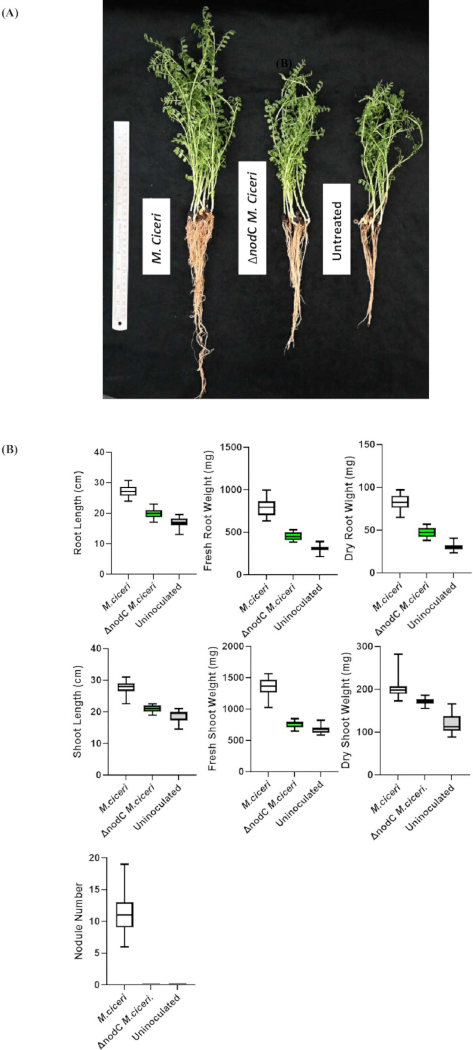
Şekil 5. Nohut enfeksiyon deneyi kullanılarak ΔnodC Mesorhizobium ciceri mutantlarının fonksiyonel doğrulaması. (A) Vahşi tip M. ciceri, ΔnodC M. ciceri ile inoküle edilen veya inoküle edilmemiş kontrol gruplarındaki temsilci nohut (Cicer arietinum) bitkileri (inokülasyondan 20 gün sonra). (B) Kök uzunluğu, taze kök ağırlığı, kuru kök ağırlığı, sürgün uzunluğu, taze sürgün ağırlığı, kuru sürgün ağırlığı ve nodül sayısı dahil olmak üzere bitki büyüme ve nodülasyon parametrelerinin kantitatif analizi. Veriler vahşi tip M. ciceri, ΔnodC M. ciceri ile inoküle edilen veya inoküle edilmemiş kontrol bitkileri için sunulmuştur. Hata çubukları standart sapmayı temsil etmektedir. İstatistiksel anlamlılık, tek yönlü varyans analizi (ANOVA) ve ardından Tukey'nin çoklu karşılaştırma testi ile belirlenmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Dosya 1. Kimyasal olarak kompetan Escherichia coli hücrelerinin hazırlanması ve doğrulanması için ayrıntılı protokol.Bu ek dosya; bakteriyel kültür hazırlığı, kompetans indüksiyonu, hücrelerin hasadı, CaCl₂–gliserol tamponu ile yıkama, alikotlama, kriyoprezervasyon ve transformasyon verimliliği testi ile doğrulama dahil olmak üzere, kimyasal olarak kompetan Escherichia coli DH5α ve E. coli S17-1λpir hücrelerinin hazırlanması ve doğrulanmasına yönelik tüm prosedürü sunmaktadır. Ayrıca kritik kalite kontrol önlemleri, saklama önerileri ve kompetans kabul kriterleri de yer almaktadır. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 2. Homoloji yönlendirmeli onarım (HDR) şablonlarının oluşturulması ve CRISPR-Cas9 genom düzenleme vektörlerinin montajı için ayrıntılı protokol.Bu ek dosya; yeşil floresan protein (GFP) kasetinin eksizyonu, pUC18-gfp ara plazmidinin oluşturulması, yukarı akış (upstream) ve aşağı akış (downstream) homoloji kollarının amplifikasyonu ve klonlanması, tam homoloji yönlendirmeli onarım (HDR) şablonunun montajı, pCasPP-rehber RNA (gRNA) vektörlerinin hazırlanması, HDR şablonlarının CRISPR-Cas9 plazmidlerine yerleştirilmesi, floresan tabanlı klon taraması ve rekombinant plazmidlerin restriksiyon analizi ve Sanger sekanslama ile doğrulanması için ayrıntılı prosedürler sunmaktadır. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 3. Biparental çiftleşme ve GFP etiketli Mesorhizobium ciceri transkonjugantlarının oluşturulması için ayrıntılı protokol. Bu ek dosya; donör ve resipient suş hazırlığını, membran filtre biparental çiftleşmeyi, transkonjugantların geri kazanımını ve antibiyotik seleksiyonunu, plazmit temizleme prosedürlerini, rekombinant kolonilerin floresan tabanlı taramasını, genomu düzenlenmiş suşların moleküler onayını ve onaylanmış GFP-pozitif M. ciceri transkonjugantlarının kısa ve uzun süreli saklanmasını açıklamaktadır. Ayrıntılı kültür koşulları, çiftleşme parametreleri ve seleksiyon prosedürleri sunulmuştur. Lütfen bu dosyayı indirmek için buraya tıklayın.
Tartışma
M. ciceri bünyesinde bir CRISPR-Cas9 genom düzenleme sisteminin kurulması, tarımsal açıdan önemli olan bu azot sabitleyici simbiyontun genetik manipülasyonundaki temel bir teknik kısıtlamayı gidermektedir. Bir gfp raporlayıcısı ve HDR kullanarak nodC lokusunun bozulmasıyla bu iş akışı, M. ciceri'de hedeflenmiş genomik modifikasyon için floresan destekli bir çerçeve sunmaktadır.
Rhizobialarda geleneksel genetik manipülasyon yaklaşımları, öncelikle Tn5 tabanlı rastgele mutajeneze veya sacB aracılı allelik değişime dayanmıştır19,26,27. Bu yaklaşımlar hala değerli olmakla birlikte, emek yoğundur, genellikle birden fazla karşı-seçilim aşaması gerektirir ve genomda sonraki düzenleme turlarına engel teşkil edebilecek antibiyotik direnç belirteçleri bırakabilir. Buna karşılık, CRISPR-Cas9 aracılı genom düzenleme, genomik mühendislik için daha hedefli ve optimize edilmiş bir alternatif sunar. Son çalışmalar, Cas9 ile ilişkili toksisiteyi azaltmak için S. meliloti'de CRISPR aracılı baz düzenleme ve Cas12e tabanlı sistemler rapor etmiş12,13, dCas9 aracılı transkripsiyonel baskılama ise R. etli'de araştırılmıştır11. Bildiğimiz kadarıyla, bu çalışma M. ciceri'de CRISPR-Cas9 aracılı kromozomal bozulmanın ilk uygulamalarından birini temsil etmektedir. Protokol; sgRNA rehberli hedefleme, biparental plazmid iletimi ve lokus spesifik düzenleme için HDR aracılı rekombinasyonu içermektedir. HDR kaseti içine gfp raporerinin entegrasyonu, düzenlendiği varsayılan kolonilerin floresan tabanlı hızlı taramasını kolaylaştırarak, alt süreçlerde moleküler doğrulama gerektiren kolonilerin sayısını azaltmaktadır.
İş akışının başarılı bir şekilde uygulanması için birkaç faktör önemliydi. Yüksek öngörülen özgüllüğe sahip sgRNA'ların seçimi, M. ciceri genomundaki potansiyel hedef dışı etkileri minimize ederken, homoloji kollarının bütünlüğünün korunması HDR aracılı rekombinasyon verimliliğini desteklemiştir. Ek olarak, biparental çiftleşme sırasında donör ve alıcı büyüme koşullarının optimize edilmesi, transkonjugantların geri kazanımını artırmıştır. Floresans tabanlı tarama, olası mutantların hızla tanımlanmasını sağlamıştır; ancak, raporlayıcı kasetin lokusa özgü entegrasyonunu doğrulamak için PCR ve Sanger sekanslama kullanılarak yapılan moleküler doğrulama hala gereklidir. Gelecekteki çalışmalarda, bazal rekombinasyon katsayısını nicelleştirmek için boş-gRNA pCasPP-HDR vektör kontrolü kullanılabilir.
Metodolojik ilerlemenin ötesinde, bu platform nohutla ilişkili rizobiyalarda simbiyotik sinyalleme ve fonksiyonel genomiği araştıran gelecekteki çalışmaları destekleyebilir28. Nohut (Cicer arietinum L.), küresel olarak önemli bir baklagil ürünüdür ve sürdürülebilir tarım sistemlerine önemli bir katkı sağlar29,30. Bu çalışmada oluşturulan ΔnodC M. ciceri suşu, konak-mikrop uyumluluğunu ve nodülasyonla ilişkili sinyal yollarını araştırmak için potansiyel olarak yararlı bir genetik arka plan sağlar. Önceki çalışmalar, sRNA'ların erken kök nodül simbiyozu sırasında düzenleyici efektörler olarak işlev gördüğünü öne sürmüştür31. Sonuç olarak, burada açıklanan nodülasyon yeteneği olmayan ΔnodC M. ciceri suşu, rizosfer iletişimi ve azot sabitleyici simbiyozun temelindeki moleküler mekanizmalara odaklanan gelecekteki çalışmaları kolaylaştırabilir.
Açıklamalar
Yazarlar, herhangi bir rakip finansal çıkar veya çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Bu çalışma, Dr. Nandita Pasari için Biyoteknoloji Departmanı (DBT)-MK Bhan Hibesi HRD-16016/15/2023-AFS-DBT tarafından desteklenmiştir. Bu çalışma ayrıca, Yeni Delhi, Hindistan'daki Ulusal Bitki Genom Araştırmaları Enstitüsü tarafından Dr. Senjuti Sinharoy'a sağlanan bir Çekirdek Hibe ile desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Agaroz | Genetix | PG-40005 | Jel elektroforezi |
| Alüminyum folyo | Rolia’s | GF83048115 | Genel laboratuvar kullanımı |
| Bakteriyolojik agar | HiMedia | GRM026 | Besiyeri hazırlama |
| Benchling CRISPR Kılavuz Tasarım Platformu | Benchling | N/A | Kılavuz RNA tasarımı |
| Borik asit | HiMedia | PCT0102 | McKnight’s çözeltisi hazırlama |
| Borosilikat cam erlen | Sigma | CLS5100500 | Kültür hazırlama |
| Borosilikat cam tüpler | Sigma | DWK73500-1075 | Kültür hazırlama |
| Kalsiyum klorür dihidrat | HiMedia | MB034 | Kompetan hücre hazırlama |
| Kalsiyum sülfat dihidrat | HiMedia | GRM328 | McKnight’s çözeltisi hazırlama |
| Karbenisilin disodyum | Duchefa Biochemie | DUC-C0109.005-18 | 100 µg/mL konsantrasyonda kullanılır |
| cDNA sentez kiti | Thermo Fisher Scientific | AB1543A | cDNA sentezi |
| Stretch film | OA | 10954049 | Genel laboratuvar kullanımı |
| Klonlama kiti/T4 DNA ligaz | Thermo Fisher Scientific | K1422 | Ligasyon reaksiyonları |
| Kongo kırmızısı | HiMedia | 573-58-0 | Mikrobiyal kültür çalışmaları |
| Bakır(II) sülfat pentahidrat | HiMedia | PCT0104 | McKnight’s çözeltisi hazırlama |
| Kültür tüpü | Borosil | 9800U08 | Birincil bakteri kültürünün üretimi; 15 cm × 2.5 cm |
| Dijital pH metre | Eutech Instruments | EC PH TUTOR DS | pH ayarı |
| Dipotasyum fosfat | HiMedia | TC596M | YMB hazırlama |
| DNA merdiveni | BIO-HELIX | DM015-R500 | Jel elektroforezi |
| DNaz uzaklaştırma kiti | Invitrogen | AM1907 | İzole edilmiş RNA'dan DNA uzaklaştırma |
| dNTP karışımı | Thermo Scientific | R0181 | PCR amplifikasyonu |
| Ethanol | Sigma-Aldrich | 1.00983.0511 | %75 konsantrasyonda kullanılır |
| Etidyum bromür | Sigma-Aldrich | E1510 | DNA jel boyama |
| FastAP Termosensitif Alkalen Fosfataz | Thermo Fisher Scientific | EF0651 | Klonlama sırasında vektörün defosforilasyonu |
| FastDigest Tamponu | Thermo Fisher Scientific | B64 | Restriksiyon sindirimleri |
| Ferrik klorür anhidroz | HiMedia | TC583 | McKnight’s çözeltisi hazırlama |
| Floresan stereomikroskop | Nikon | SMZ25 | GFP taraması |
| Fungisit, Bavistin | Crystal Crop Protection | Bavistin Carbendazim 50% WP | Tohum uygulaması |
| Gel ekstraksiyon kiti | QIAGEN | 28704 | DNA saflaştırma |
| Gliserol | Thermo Fisher Scientific | Q24505 | Kompetan hücreler/gliserol stokları |
| Orbital çalkalayıcıya sahip büyüme inkübatörü | MRC | LOM-150 | Bakteriyel kültür |
| Eldiven | Kimtech | 97612 | Kişisel koruyucu ekipman |
| HEPES | HiMedia | MB016 | Oligonükleotid tavlama |
| IPTG | G Biosciences | RC1113D | Mavi-beyaz tarama |
| Laminer hava akış kabini | Biolink | BL-H1300 | Steril işlem |
| LB agar | HiMedia | M1151 | Bakteriyel kültür plakları |
| LB sıvı besiyeri | HiMedia | G1245 | Bakteriyel kültür |
| Magnezyum sülfat | HiMedia | GRM1281-500G | YMB hazırlama |
| Magnezyum sülfat heptahidrat | HiMedia | PCT0008 | McKnight’s çözeltisi hazırlama |
| Manganez(II) sülfat tetrahidrat | Sigma-Aldrich | M3634 | McKnight’s çözeltisi hazırlama |
| Mannitol | HiMedia | MB198 | YMB hazırlama |
| McKnight’s çözeltisi | Laboratuvar hazırlaması | N/A | Bitki besin çözeltisi |
| Mikro uçlar, 0.2–10 µL | Tarsons | 521000 | Sıvı aktarımı |
| Mikro uçlar, 2–200 µL | Tarsons | 521010 | Sıvı aktarımı |
| Mikro uçlar, 200–1000 µL | Tarsons | 521020X | Sıvı aktarımı |
| Mikrosantrifüj tüpü, 0.5 mL | Tarsons | 500000 | Numune işleme |
| Mikrosantrifüj tüpü, 1.5 mL | Tarsons | 500010 | Numune işleme |
| Mikrosantrifüj tüpü, 2.0 mL | Tarsons | 500020 | Numune işleme |
| Molibdik asit | Sigma-Aldrich | 232084 | McKnight’s çözeltisi hazırlama |
| NanoDrop spektrofotometre | Thermo Fisher Scientific | 13-400-519 | DNA/RNA kantifikasyonu |
| Neomisin | Duchefa Biochemie | M0135 | 50 µg/mL konsantrasyonda kullanılır |
| Nükleaz içermeyen su | HiMedia | ML064-100ML | Moleküler biyoloji kullanımı |
| PCR master mix | Thermo Fisher Scientific | K0171 | 2× master mix |
| PCR tüp şeritleri, 0.2 mL | Tarsons | 610040 | PCR kurulumu |
| Petri plakları, 90 mm | PSC | 2041 | Agar plakları |
| Pipet, 0.1–2.5 µL | Eppendorf | N10178M | Sıvı aktarımı |
| Pipet, 0.5–10 µL | Eppendorf | H40069L | Sıvı aktarımı |
| Pipet, 2–20 µL | Eppendorf | H30046M | Sıvı aktarımı |
| Pipet, 10–100 µL | Eppendorf | I00395M | Sıvı aktarımı |
| Pipet, 20–200 µL | Eppendorf | M38186M | Sıvı aktarımı |
| Pipet, 100–1000 µL | Eppendorf | N20610M | Sıvı aktarımı |
| Plazmid DNA ekstraksiyon kiti | QIAGEN | 12143 | Plazmid izolasyonu |
| Potasyum klorür | HiMedia | TC010 | McKnight’s çözeltisi hazırlama |
| Potasyum dihidrojen fosfat anhidroz | HiMedia | TC011M | McKnight’s çözeltisi hazırlama |
| PVDF membran filtre, 0.22 µm, 47 mm | MilliporeSigma | GVWP04700 | Biparental çiftleşme |
| Kantitatif gerçek zamanlı PCR cihazı | Bio-Rad | CFX96 | RT-qPCR |
| Soğutmalı masaüstü santrifüj | Eppendorf | 04-987-373 | Hücre hasadı |
| Restriksiyon enzimi, BbsI | Thermo Fisher Scientific | ER1011 | gRNA klonlama |
| Restriksiyon enzimi, EcoRI | Thermo Fisher Scientific | FD0274 | Klonlama |
| Restriksiyon enzimi, KpnI | Thermo Fisher Scientific | FD0524 | Klonlama |
| Restriksiyon enzimi, SacI | Thermo Fisher Scientific | FD1133 | Klonlama |
| Restriksiyon enzimi, XbaI | Thermo Fisher Scientific | FD0684 | Klonlama |
| RNaz içermeyen DNaz | QIAGEN | 79254 | RNA temizleme |
| Kum | Ram Surat | Sand | Bitki büyüme substratı |
| Sıralayıcı | Applied Biosystems | ABI3730xl DNA Analyzer | Sanger dizileme |
| SOC besiyeri | Laboratuvar hazırlaması | N/A | Transformasyon toparlanması |
| Sodyum klorür | HiMedia | TC046 | Besiyeri hazırlama |
| Sodyum hidroksit | HiMedia | PCT1325 | HEPES pH ayarı |
| Steril cerrahi bıçak | Medicare Surgical | 16020 | Gel eksizyonu/doku işleme |
| Steril şırınga | HMD Dispovan | 10ml syringe without needle | Steril filtrasyon |
| Steril şırınga filtresi, 0.22 µm | Merck Millex Durapore | 12766842 | Filtre sterilizasyonu |
| SYBR Green master mix | New England Biolabs | M3003E | RT-qPCR |
| Tetrasiklin | Duchefa Biochemie | T01050 | 5 µg/mL konsantrasyonda kullanılır |
| Termal döngüleyici | Applied Biosystems | A24811 | PCR amplifikasyonu |
| Kağıt havlu | Rolia’s | 07AAECR4885K1ZT | Genel laboratuvar kullanımı |
| TRIzol reaktifi | Invitrogen | 15596026 | RNA izolasyonu |
| UV transilüminatör | Analytik Jena | TW-43 | Gel görselleştirme |
| UV-Vis spektrofotometre | Eppendorf | D30 | OD600 ölçümü |
| Vis küvetler | Eppendorf | 30079345 | OD600 ölçümü |
| Vorteks karıştırıcı | Neuation | iSWIX-VT | Numune karıştırma |
| X-gal | G Biosciences | RC1233 | Mavi-beyaz tarama |
| Maya özütü | HiMedia | RM668-500G | Besiyeri hazırlama |
| Çinko sülfat heptahidrat | Sigma-Aldrich | Z0251 | McKnight’s çözeltisi hazırlama |
Kaynaklar
- Doudna JA, Charpentier E. The new frontier of genome engineering with CRISPR-Cas9. Science. 2014;346(6213):1258096.
- Jiang W, Bikard D, Cox D, Zhang F, Marraffini LA. RNA-guided editing of bacterial genomes using CRISPR-Cas systems. Nature biotechnology. 2013;31(3):233-9.
- Bertrand C, Thibessard A, Bruand C, Lecointe F, Leblond P. Bacterial NHEJ: a never ending story. Molecular microbiology. 2019;111(5):1139-51.
- Loureiro A, da Silva GJ. Crispr-cas: Converting a bacterial defence mechanism into a state-of-the-art genetic manipulation tool. Antibiotics. 2019;8(1):18.
- Altenbuchner J. Editing of the Bacillus subtilis genome by the CRISPR-Cas9 system. Applied and environmental microbiology. 2016;82(17):5421-7.
- Wang Y, et al. Bacterial genome editing with CRISPR-Cas9: deletion, integration, single nucleotide modification, and desirable “clean” mutant selection in Clostridium beijerinckii as an example. ACS synthetic biology. 2016;5(7):721-32.
- Oh J-H, van Pijkeren J-P. CRISPR–Cas9-assisted recombineering in Lactobacillus reuteri. Nucleic acids research. 2014;42(17):e131-e.
- Cobb RE, Wang Y, Zhao H. High-efficiency multiplex genome editing of Streptomyces species using an engineered CRISPR/Cas system. ACS synthetic biology. 2015;4(6):723-8.
- Wanjofu EI, et al. Nodulation and growth promotion of chickpea by Mesorhizobium isolates from diverse sources. Microorganisms. 2022;10(12):2467.
- Haskett T, et al. Complete genome sequence of Mesorhizobium ciceri strain CC1192, an efficient nitrogen-fixing microsymbiont of Cicer arietinum. Genome Announcements. 2016;4(3):10.1128/genomea. 00516-16.
- Bellahsen O, Díaz-Méndez R, Romero D. Genomic engineering in Rhizobium etli: implementation and evaluation of systems based on dCas9. Frontiers in Microbiology. 2025;16:1604430.
- Liu G, et al. An efficient CRISPR/Cas12e system for genome editing in Sinorhizobium meliloti. ACS Synthetic Biology. 2023;12(3):898-903.
- Wang L, Xiao Y, Wei X, Pan J, Duanmu D. Highly efficient CRISPR-mediated base editing in Sinorhizobium meliloti. Frontiers in Microbiology. 2021;12:686008.
- Schäfer A, et al. Small mobilizable multi-purpose cloning vectors derived from the Escherichia coli plasmids pK18 and pK19: selection of defined deletions in the chromosome of Corynebacterium glutamicum. Gene. 1994;145(1):69-73.
- Rütering M, et al. Tailor-made exopolysaccharides—CRISPR-Cas9 mediated genome editing in Paenibacillus polymyxa. Synthetic Biology. 2017;2(1):ysx007.
- Ledermann R, Bartsch I, Remus-Emsermann MN, Vorholt JA, Fischer H-M. Stable fluorescent and enzymatic tagging of Bradyrhizobium diazoefficiens to analyze host-plant infection and colonization. Molecular Plant-Microbe Interactions. 2015;28(9):959-67.
- Göttfert M. Regulation and function of rhizobial nodulation genes. FEMS microbiology reviews. 1993;10(1-2):39-63.
- Kant C, Pradhan S, Bhatia S. Dissecting the root nodule transcriptome of chickpea (Cicer arietinum L.). PLoS One. 2016;11(6):e0157908.
- Hsu PD, et al. DNA targeting specificity of RNA-guided Cas9 nucleases. Nature biotechnology. 2013;31(9):827-32.
- Doench JG, et al. Optimized sgRNA design to maximize activity and minimize off-target effects of CRISPR-Cas9. Nature biotechnology. 2016;34(2):184-91.
- Norrander J, Kempe T, Messing J. Construction of improved M13 vectors using oligodeoxynucleotide-directed mutagenesis. Gene. 1983;26(1):101-6.
- Simon R, Priefer U, Pühler A. A broad host range mobilization system for in vivo genetic engineering: transposon mutagenesis in gram negative bacteria. Bio/technology. 1983;1(9):784-91.
- Hanahan D, Jessee J, Bloom FR. [4] Plasmid transformation of Escherichia coli and other bacteria. Methods in enzymology. 1991;204:63-113.
- Alexandre A, et al. Natural populations of chickpea rhizobia evaluated by antibiotic resistance profiles and molecular methods. Microbial Ecology. 2006:128-36.
- Weerakkody LR, et al. A rapid, inexpensive and effective method for the efficient isolation of genomic DNA from Gram-negative bacteria. Molecular Genetics and Genomics. 2024;299(1):26.
- Selbitschka W, Niemann S, Pühler A. Construction of gene replacement vectors for Gram− bacteria using a genetically modified sacRB gene as a positve selection marker. Applied microbiology and biotechnology. 1993;38(5):615-8.
- Yadav A, Singh RP, Singh AL, Singh M. Identification of genes involved in phosphate solubilization and drought stress tolerance in chickpea symbiont Mesorhizobium ciceri Ca181. Archives of microbiology. 2021;203(3):1167-74.
- Dicenzo GC, et al. Multidisciplinary approaches for studying rhizobium–legume symbioses. Canadian Journal of Microbiology. 2019;65(1):1-33.
- Calia C, et al. A bibliometric analysis of chickpea agronomic practices in the world during 45 years of scientific research. Legume Science. 2024;6(1):e219.
- Sandhu J, Tripathi S, Chaturvedi S. Chickpea nutritional status and value chain for sustainable development. Sustainable food value chain development: Perspectives from developing and emerging economies: Springer; 2023. p. 175-83.
- Ren B, Wang X, Duan J, Ma J. Rhizobial tRNA-derived small RNAs are signal molecules regulating plant nodulation. Science. 2019;365(6456):919-22.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında