Bu makale, nükleozid modifiyeli insan telomeraz ters transkriptazı (hTERT) mRNA'sının (hTERT mRNA) senesent insan fibroblastlarına verimli bir şekilde iletilmesi için optimize edilmiş bir ters transfeksiyon protokolü sunmaktadır. Kültür yüzeylerinin hTERT mRNA-lipid kompleksleri ile önceden kaplanması alımı artırarak telomeraz aktivasyonunu, telomer uzamasını ve kısmi gençleşmeyi sağlar. Kültürler, sonunda ölümsüzleşme gerçekleşmeden tekrar senesense veya krize girer.
Yöntem makalesi
Erken Senesans Dönemindeki İnsan Fibroblastlarına Telomeraz mRNA Teslimatı için Optimize Edilmiş Ters Transfeksiyon Protokolü
* These authors contributed equally
Bu makalede
Özet
Özet
Hücresel yaşlanma; azalmış membran akışkanlığı, bozulmuş endozomal trafik, azalmış endositik kapasite ve artmış hücre dışı RNaz aktivitesi dahil olmak üzere, mRNA iletimini engelleyen hücresel fizyolojideki derin değişikliklerle ilişkilidir. Bu engeller, özellikle büyük terapötik transkriptlerin iletimi söz konusu olduğunda, yaşlanmış hücrelerde RNA tabanlı yaklaşımların uygulanmasını sınırlamıştır. Bu protokol, modifiye edilmiş haberci RNA'nın (mRNA) yaşlanmış insan fibroblastlarına verimli iletimi için optimize edilmiş bir ters transfeksiyon yöntemini tanımlamaktadır. Model transkript olarak insan telomeraz ters transkriptaz (hTERT) mRNA'sı kullanılmış olsa da, iş akışı diğer mRNA'lar için de geniş ölçüde uygulanabilirdir. RNA-lipid komplekslerinin hücre yapışmasından sonra kültür ortamına eklendiği geleneksel transfeksiyon yöntemlerinin aksine, ters transfeksiyon, kompleksleri hücre ekimi öncesinde kültür yüzeyine yerleştirerek, yapışan hücreler ile transfeksiyon kompleksleri arasında doğrudan etkileşim sağlar. Transfeksiyon verimliliğini maksimize etmek için protokol; psödouridin ve 5-metilsitidin içeren nükleozid-modifiye mRNA, uzatılmış poli(A) kuyrukları, optimize edilmiş kompleks oluşum zamanlaması, RNaz inhibisyonu, klorokin ile endozomal pH'ın geçici olarak yükseltilmesi, artırılmış hücre ekim yoğunluğu ve uzatılmış inkübasyon sürelerini içermektedir. Bu yaklaşım kullanılarak, 5 kb'lık bir hTERT mRNA transkriptinin iletimini takiben yaşlanmış fibroblastlarda yaklaşık %50–80 oranında transfeksiyon verimlilikleri elde edilmiştir. Pik telomeraz aktivitesi, transfeksiyondan 24–48 saat sonra tespit edilmiştir. Tek bir transfeksiyon döngüsü ölçülebilir telomer uzaması sağlarken, üç ardışık transfeksiyon önemli ancak sınırlı bir telomer uzamasıyla sonuçlanmıştır. Azalmış yaşlanma ile ilişkili β-galaktosidaz aktivitesi, azalmış p16 ve p21 ekspresyonu, hücre morfolojisinin restorasyonu ve replikatif ömrün uzaması dahil olmak üzere, yaşlanma ile ilişkili fenotiplerin kısmi geri dönüşü 72–96 saat içinde tespit edilebilmiştir. İletilen hTERT mRNA'sı 72–96 saat içinde degrade olmuş ve ölümsüzleşme gözlemlenmemiştir. Bu protokol, yaşlanmış hücrelere geçici mRNA iletimi için pratik bir yaklaşım sunmaktadır ve geniş bir hücre tipi ve tür yelpazesine adapte edilebilir.
Giriş
Ters transfeksiyon yaklaşımı, senesent hücrelerin standart transfeksiyon yöntemleri önünde oluşturduğu temel engelleri aşan kritik bir metodolojik adaptasyonu temsil eder. Hücrelerin önceden plaka üzerine ekildiği ve transfeksiyon kompleksleri eklenmeden önce yapışmalarına izin verildiği ileri transfeksiyonun aksine, ters transfeksiyonda süspansiyondaki hücreler, önceden oluşturulmuş hTERT mRNA-lipid komplekslerinin üzerine doğrudan eklenir. Bu teknik, membran yeniden şekillenmesinin en aktif olduğu kritik yapışma aşamasında transfeksiyon komplekslerine maruz kalmayı maksimize ederek, senesent hücrelerdeki transfeksiyon verimliliğini önemli ölçüde artırır.
Protokolün temel kavramsal değişikliği, yaşlı (senesent) hücreleri sadece genç hücrelerin transfekte edilmesi zor versiyonları olarak değil, ayrı bir iletim problemi olarak ele almaktır. Senesens sırasında fosfolipidler, sfingolipidler ve kolesterol dahil olmak üzere membran lipid kompozisyonundaki global değişiklikler; membran akışkanlığını, eğriliğini ve protein-lipid etkileşimlerini değiştirirken, senesensle ilişkili sekretuar fenotipe de katkıda bulunur1,2,3. Senesent hücreler ayrıca, kısmen amphiphysin-1'in aşağı düzenlenmesi ve caveolin ekspresyonundaki kompanzatuar değişiklikler tarafından tetiklenen, reseptör aracılı alımı ve sinyal iletimini körelten; azalmış klatrin ve caveolae aracılı reseptör endositozuna ve değişmiş endositik yönlendirmeye sahiptir4,5,6. Paralel olarak, Rab7 tarafından düzenlenen geç endozom-lizozom ekseni ve daha geniş endozomal-otofajik-lizozomal (EAL) ağ düzensizleşir; Rab7, yaşlanma ve nörodejenerasyonda bozulmuş olan endolizozomal olgunlaşma ve otofagozom-lizozom füzyonunun ana kontrolcüsü olarak görev yapar7.
Senesent hücreler, TFEB/TFE3 tarafından yönlendirilen lizozomal biyogenez ve şaperon aracılı otofaji dahil olmak üzere lizozomal işleme ve adaptasyon sisteminin (LYPAS) birçok bileşenini yaygın olarak yukarı düzenleyerek lizozomal kütleyi artırırlar. Bununla birlikte, münferit lizozomlar sıklıkla yükselmiş lüminal pH, membran hasarı ve değişmiş proteolitik kapasite sergileyerek, sayıca artmalarına rağmen lizozomal disfonksiyona katkıda bulunurlar8,9,10,11. Toplu olarak bu değişiklikler, internalize edilen materyalin degradatif endolizozomal kompartmanlara daha verimli bir şekilde yönlendirilmesine yol açarak, iletilen RNA veya proteinin üretken sitozolik salınım gerçekleşmeden önce degrade edilme olasılığını artırabilir9,10,11. Ters transfeksiyon, membranların yeniden şekillendiği en erken pencereyi, yani adezyon sırasında doğrudan hedefleyerek, hücreler ile mRNA-lipid kompleksleri arasında sürdürülen, yüksek aviditeli bir teması zorlar ve tam adezif senesent hücrelerdeki bozulmuş kararlı durum endositozunu en azından kısmen baypas eder4,5,6,12.
RNA tasarımı tarafında protokol, yaşlanma bağlamında basit bir kapak + kuyruk temel hattının yetersiz olduğunu varsayar: translasyonu endozomal Toll benzeri reseptör algılamasından ve tip I interferon indüksiyonundan ayırmak için tam nükleozid modifikasyonu (örneğin, psödouridin veya N1‑metilpsödouridin artı 5‑metilsitidin) pazarlık edilemez bir gereklilik olarak ele alınır. Temel çalışmalar, modifiye nükleozidlerin RNA'ya dahil edilmesinin TLR3, TLR7 ve TLR8 aktivasyonunu baskıladığını ve dendritik hücre sitokin üretimini belirgin şekilde azalttığını göstermiş olup, güncel nükleozid modifiyeli mRNA platformlarının azalmış doğuştan gelen immünojenitesi için mekanistik bir temel sağlamıştır13. mRNA–LNP aşıları ve mRNA ilaçları üzerine yapılan daha güncel incelemeler, doğuştan gelen bağışıklık aktivasyonunu minimize ederken in vivo stabiliteyi ve translasyonu artırmak için 5′ kapağının, UTR'lerin, kodlama dizisinin ve poli(A) kuyruğunun koordineli mühendisliğinin önemini vurgulamaktadır14. Özellikle, poli(A) kuyruk uzunluğu ve mimarisi, in vitro transkribe edilen mRNA stabilitesinin ve translasyonel çıktısının temel belirleyicileri olarak ortaya çıkmış ve terapötik mRNA'larda genişletilmiş veya mühendislik ürünü poli(A) tasarımlarını teşvik etmiştir15.
Buna ek olarak, protokol; kompleks oluşumu ve hücreye alım sırasında hücre dışı ve endozomal RNazlara karşı korumayı ve klorokin16,17 gibi geçici bir lizozomotropik ajan kullanılarak tanımlanmış bir endozomal kaçış penceresini açıkça yapılandırmaktadır. Klorokin, uzun süredir endozomal bariyerlerin fonksiyonel bir probu olarak kullanılmaktadır ve endozomal membran yıkımını ve nükleik asit kargosunun sitozole kaçışını teşvik ederek, siRNA veya antisense oligonükleotidlerin hedef etkileşimini ve susturma kapasitesini belirgin şekilde artırabilmektedir18. Aynı zamanda, LNP ile iletilen mRNA'nın canlı hücre ve süper-çözünürlük görüntülemeleri; üretken iletimin, başlangıçtaki hücreye alımdan ziyade, erken/geri dönüşümlü endozomlardan gerçekleşen nadir kaçış olayları nedeniyle ciddi şekilde kısıtlandığını göstermiş ve bu durum mRNA terapötikleri için bilinçli bir endozomal kaçış basamağı tasarlamanın önemini vurgulamıştır19.
Toplamda, membran dinamikleri, endositik trafik, lizozomal işlemleme ve doğal bağışıklık aktivasyonundaki bu yaşlanma ile ilişkili değişiklikler, etkili mRNA iletiminin önünde önemli engeller oluşturur. Burada açıklanan ters-transfeksiyon stratejisi; optimize edilmiş mRNA mühendisliği, RNase koruması, geliştirilmiş endozomal kaçış ve tutunan hücrelerin önceden oluşturulmuş mRNA-lipid komplekslerine doğrudan maruz bırakılmasını birleştirerek bu kısıtlamaları gidermek amacıyla geliştirilmiştir. Model kargo olarak hTERT mRNA kullanılmış olsa da, bu iş akışı diğer büyük terapötik mRNA transkriptlerinin yaşlı ve transfeksiyona dirençli hücre popülasyonlarına iletimi için geniş ölçüde uygulanabilir20,21,22.
Protokol
1. hTERT mRNA'nın In vitro Transkripsiyonu
- In vitro Transkripsiyon (IVT) (ARCA ve ΨUTP ile)
- Tablo 1'e göre 20 µL'lik bir IVT reaksiyonu hazırlayın. Daha yüksek verim gerekiyorsa reaksiyonu lineer olarak ölçeklendirin.
- T7 RNA polimeraz hariç tüm reaksiyon bileşenlerini RNaz içermeyen bir tüpte birleştirin. T7 RNA polimerazı en son ekleyin, nazikçe karıştırın ve tüpü kısaca santrifüjleyin.
- Reaksiyonu 37 °C'de 0,5–4 sa boyunca inkübe edin.
NOT: İnkübasyon süresini kalıp uzunluğuna göre ayarlayın. Daha kısa kalıplar (yaklaşık 500 bp) içeren reaksiyonları yaklaşık 30 dk ve daha büyük kalıplar (yaklaşık 4 kb) içeren reaksiyonları 3–4 sa inkübe edin.
- DNaz işlemi
- 1 µL RNaz içermeyen DNaz I'i doğrudan IVT reaksiyon karışımına ekleyin.
- Reaksiyonu 37 °C'de 15 dk inkübe edin.
NOT: DNaz işlemi, sentezlenen mRNA'nın ön purifikasyonu yapılmadan doğrudan IVT reaksiyonu içerisinde gerçekleştirilmelidir.
- mRNA purifikasyonu
- Reaksiyon karışımını seyreltmek için 115 µL nükleaz içermeyen H₂O ekleyin.
- Üretici talimatlarına uygun olarak bir RNA temizleme kiti kullanarak mRNA'yı purifiye edin.
- Purifiye edilen mRNA'yı 20–30 µL nükleaz içermeyen H₂O ile elüe edin.
- mRNA saflığını spektrofotometri ile ölçün ve RNA bütünlüğünü %1,0–1,5'lik denatüre agaroz jel veya düşük yüzdeli poliakrilamid jel üzerinde elektroforez ile doğrulayın.
- Poly(A) kuyruk ekleme
- Tablo 2'ye göre 50 µL'lik bir poly(A)-kuyruk ekleme reaksiyonu hazırlayın. Reaksiyon bileşenlerini nazikçe karıştırın ve 37 °C'de 30–60 dk inkübe edin.
NOT: İnkübasyon süresini kullanılan RNA miktarına göre ayarlayın. - 2 µL 0,5 M EDTA (pH 8,0) ekleyerek reaksiyonu sonlandırın.
- Tablo 2'ye göre 50 µL'lik bir poly(A)-kuyruk ekleme reaksiyonu hazırlayın. Reaksiyon bileşenlerini nazikçe karıştırın ve 37 °C'de 30–60 dk inkübe edin.
- Final purifikasyon ve kalite kontrol
- Üretici talimatlarına uygun olarak bir RNA temizleme kiti kullanarak poly(A) kuyruklu mRNA'yı purifiye edin.
- Purifiye edilen mRNA'yı 20–30 µL nükleaz içermeyen H₂O ile elüe edin.
- Transfeksiyona geçmeden önce mRNA kalitesini değerlendirin
- mRNA konsantrasyonunu 260 nm'de ölçün ve A260/A280 ve A260/A230 oranlarını kullanarak saflığı belirleyin. A260/A280 değerleri yaklaşık 2,0 ve A260/A230 değerleri 2,0'dan büyük olan mRNA preparatlarını kullanın.
- Üretici talimatlarına uygun olarak jel elektroforezi veya bir RNA analiz sistemi kullanarak mRNA bütünlüğünü değerlendirin.
- Poly(A) kuyruk uzunluğunu RT-PCR veya Bioanalyzer analizi ile konfirme edin. Poly(A) kuyruk uzunluğunun 120 ile 200 nükleotit arasında olduğunu doğrulayın.
- Dondurma-çözme döngülerini minimize etmek için purifiye edilen mRNA'yı alikotlara ayırın ve alikotları −80 °C'de saklayın.
2. Ters transfeksiyon
- Gün −1: Transfeksiyon öncesi hazırlık
- Senesent fenotipini doğrulayın
- Temsili bir hücre örneği üzerinde senesansla ilişkili β-galaktosidaz (SA-β-gal) boyaması gerçekleştirin. Hücrelerin %70'inden fazlasının pozitif olduğunu doğrulayın.
- Senesans markerlarının (p16 ve p21) ekspresyonunu qRT-PCR veya immunofloresans ile konfirme edin.
- Hücre canlılığını belirleyin ve canlılığın %90'ın üzerinde olduğunu doğrulayın.
- Reaktifleri hazırlayın
- Tam kültür besiyerini 37 °C'ye önceden ısıtın.
- Fosfat tamponlu salini (PBS) 37 °C'ye önceden ısıtın.
- Taze Opti-MEM I besiyeri hazırlayın.
NOT: Kullanımdan önce Opti-MEM I içerisine RNaz inhibitörü eklemeyin.
- Senesent fenotipini doğrulayın
- Gün 0: Transfeksiyon günü
NOT: Reaktif hazırlığından transfekte edilen hücrelerin inkübasyonuna kadar yaklaşık 3 saat süre tanıyın.- hTERT mRNA hazırlığı
- hTERT mRNA'sını buz üzerinde çözdürün. mRNA konsantrasyonunu ölçün ve 0,5 ile 1,0 µg/µL arasındaki konsantrasyonlara sahip preparatları kullanın.
- İstenen miktardaki hTERT mRNA'sını, kullanılan kültür formatına göre (Tablo 3) Opti-MEM I içerisinde dilüe edin. 0,5–1,0 U/µL son konsantrasyona ulaşacak şekilde RNaz inhibitörü ekleyin ve nazikçe karıştırın.
- Dilüe edilmiş mRNA'yı kompleks oluşumuna kadar buz üzerinde tutun.
NOT: RNaz inhibitörünü kullanımdan hemen önce ekleyin. mRNA'yı RNaz inhibitörü ile birlikte saklamayın, çünkü dondurulduktan sonra aktivitesi azalır.
- Transfeksiyon reaktifi hazırlığı
- Steril RNaz-free bir tüpte 6,0 µL transfeksiyon reaktifini 100 µL Opti-MEM I ile birleştirin. Pipetleme yaparak nazikçe karıştırın.
- Karışımı oda sıcaklığında 5 dk inkübe edin.
NOT: Büyük hTERT mRNA konstrüktları (~5 kb) için reaktif-mRNA oranlarını, 100 ng mRNA başına 0,4 ile 0,6 µL reaktif arasında optimize edin.
- mRNA-Lipid kompleks oluşumu
- Dilüe edilmiş hTERT mRNA çözeltisini (100 µL), dilüe edilmiş transfeksiyon reaktifi çözeltisine (106 µL) ekleyin. 5–6 kez pipetleyerek nazikçe karıştırın.
- Karışımı oda sıcaklığında 15–20 dk inkübe edin.
- Kompleksleşme süresini 30 dakikadan fazla uzatmayın.
- Hafif bulanık bir çözelti oluşumuyla başarılı kompleks oluşumunu doğrulayın.
NOT: Hücre hazırlığını kompleksleşme süresi boyunca gerçekleştirin.
- Ters transfeksiyon için hücre hazırlığı
- Senesent hücre kültürlerinden kültür besiyerini aspire edin.
- Hücreleri önceden ısıtılmış PBS ile bir kez yıkayın (6 kuyucuklu plakanın her kuyucuğu için 2 mL).
- Kuyucuk başına 500 µL %0,05 trypsin-EDTA ekleyin.
- Hücreleri 37 °C'de 3–5 dk inkübe edin.
- Trypsin'i, serum içeren 3 mL tam besiyeri ile nötralize edin.
- Tek hücre süspansiyonu elde etmek için hücreleri nazikçe triture edin.
- Hemositometre veya otomatik hücre sayıcı kullanarak hücre sayısını belirleyin.
- Tam besiyeri içerisinde, kuyucuk başına 2,0–2,5 × 10⁵ hücre içeren bir süspansiyon hazırlayın.
NOT: Senesent hücreler mekanik strese karşı oldukça hassas olduğundan uzun süreli tripsinizasyondan kaçının. Hücreleri süspansiyonda tutun; ters transfeksiyondan önce ön ekleme (pre-plating) yapmayın.
- Ters transfeksiyon
- Kültür plakası hazırlığı
- 6 kuyucuklu plakanın her kuyucuğuna 500 µL %0,01 poly-L-lysine ekleyin ve oda sıcaklığında 30 dk inkübe edin.
- Kaplama çözeltisini kullanımdan hemen önce aspire edin.
- Her kuyucuğun merkezine 200 µL hTERT mRNA-lipid kompleksi ekleyin.
- Plakayı 37 °C ve %5 CO₂ altında 30 dk inkübe edin.
NOT: Plaka kaplamasını kompleks oluşumu ve hücre hazırlığı ile paralel olarak gerçekleştirin.
- Hücre süspansiyonu hazırlığı
- 2,0–2,5 × 10⁵ hücreyi 1800 µL antibiyotiksiz tam besiyeri içinde süspanse edin.
- Homojen bir tek hücre süspansiyonu elde etmek için hücreleri nazikçe yeniden süspanse edin.
NOT: Transfeksiyon sırasında antibiyotiksiz besiyeri kullanın.
- Hücrelerin kompleksler üzerine ekilmesi
- 1800 µL hücre süspansiyonunu doğrudan önceden oluşturulmuş hTERT mRNA-lipid komplekslerinin üzerine ekleyin.
- Hücrelerin eşit dağılması için plakayı her yöne 2–3 kez nazikçe eğin.
NOT: Hücre eklemesinden sonra süspansiyonu pipetlemeyin, çünkü bu durum mRNA-lipid komplekslerini bozabilir.
- Hücre inkübasyonu
- Hücreleri %5 CO₂ içeren nemlendirilmiş bir inkübatörde 37 °C'de 6–8 saat inkübe edin.
- Transfeksiyondan 2–3 saat sonra hücre tutunmasını ışık mikroskobu ile izleyin.
- Hücrelerin eşit dağıldığını ve kültür yüzeyine tutunmaya başladığını doğrulayın.
NOT: Aşırı sayıda yüzen hücre veya hücresel debris, transfeksiyonla ilişkili sitotoksisiteye işaret edebilir.
- Kültür plakası hazırlığı
- hTERT mRNA hazırlığı
3. Sitotoksisitenin azaltılması
- Hücre kaybı %20'yi aşarsa, transfeksiyon maruziyet süresini 48 s saate düşürün.
- Hücre sağkalımını artırmak için transfeksiyon süresince kültürleri 10 µM ROCK inhibitörü Y-27632 ile destekleyin.
- Transfeksiyondan 6–8 s sonra, kısmen yapışmış hücreleri minimum düzeyde rahatsız ederek transfeksiyon ortamını dikkatlice aspire edin. Her kuyucukta yaklaşık 100 µL kalıntı ortam bırakın.
- Her kuyucuğa, %15 FBS ile desteklenmiş 1 mL taze, önceden ısıtılmış tam büyüme ortamı ekleyin.
- Ortam değişiminden hemen sonra klorokinle nihai konsantrasyonu 10–20 µM olacak şekilde ekleme yapın.
- Kültürleri, %5 CO₂ içeren nemlendirilmiş bir inkübatörde 37 °C'de 2 s daha inkübe edin.
- Klorokin içeren ortamı taze tam büyüme ortamı ile değiştirin.
- Kültürleri büyümenin devam etmesi için inkübatöre geri yerleştirin.
NOT: Toparlanma dönemi boyunca hücre morfolojisini ve canlılığını izleyin. Aşırı hücre kopması veya debris oluşumu, transfeksiyonla ilişkili sitotoksisiteye işaret edebilir.
4. Transfeksiyon sonrası analiz
- Transfeksiyondan 24–48 saat sonra TERT protein ekspresyonunu değerlendirin.
- Standart laboratuvar prosedürlerine göre western blotting veya immünofloresan boyama ile TERT protein seviyelerini ölçün.
- Aynı zaman aralığında uygun bir telomeraz aktivite testi kullanarak telomeraz aktivitesini ölçün.
NOT: Geçici olarak iletilen hTERT mRNA'nın yıkımı nedeniyle telomeraz aktivitesi tipik olarak 48 saatten sonra azalır. - Transfeksiyondan 48–72 saat sonra monokrom multipleks kantitatif PCR (MMqPCR) veya eş değer bir telomer uzunluğu analiz yöntemi kullanarak telomer uzunluğunu değerlendirin.
NOT: Başarılı hTERT mRNA iletimini takiben saptanabilir telomer uzaması gözlemlenebilir. - Transfeksiyondan 7 gün sonra senesansla ilişkili ve gençleşmeyle ilişkili fenotipleri değerlendirin
- Senesansla ilişkili β-galaktosidaz (SA-β-gal) aktivitesini ölçün.
- p16 ve p21 ekspresyon seviyelerini ölçün.
- Ki67 ekspresyonunu değerlendirin.
- Hücresel morfolojiyi ışık mikroskobu ile inceleyin.
NOT: Senesansla ilişkili fenotiplerdeki ve proliferatif özelliklerdeki değişiklikleri değerlendirmek için işlem görmüş kültürleri, işlem görmemiş veya yalancı transfekte edilmiş senesent kontrollerle karşılaştırın.
5. Tekrarlanan dozlama protokolü (Opsiyonel)
- Bölüm 2–4'te açıklandığı şekilde ilk transfeksiyonu gerçekleştirin.
- Transfeksiyonları şu takvime göre tekrarlayın: 0. Gün: İlk transfeksiyon; 5. Gün: İkinci transfeksiyon; 10–12. Gün: Üçüncü transfeksiyon.
- Hücreleri adherent kültürler olarak sürdürün ve sonraki transfeksiyonlardan önce tripsinizasyon yapmayın.
- Bölüm 2.2.1–2.2.3'te açıklandığı şekilde taze hTERT mRNA–lipid kompleksleri hazırlayın.
- Her kuyucuktaki kültür ortamını aspire edin.
- Her kuyucuğa doğrudan 200 µL hTERT mRNA–lipid kompleksi ekleyin.
- Kompleks eklemesinin hemen ardından 800 µL taze komplet F-10 medyumu ekleyin.
- Hücreleri %5 CO₂ içeren nemlendirilmiş bir inkübatörde 37 °C'de 4–6 sa boyunca inkübe edin.
- Transfeksiyon medyumunu taze komplet medyum ile değiştirin.
NOT: Kümülatif transfeksiyona bağlı sitotoksisiteyi minimize etmek için işlemi en fazla üç transfeksiyon döngüsü ile sınırlandırın.
6. Forward transfeksiyon protokolü (2 µg/mL, 6 kuyucuklu format)
- Gün −1: Hücre ekimi
- %0,05 trypsin-EDTA kullanarak senesen veya erken senesen fibroblastları ayırın.
- Trypsini tam kültür besiyeri ile nötralize edin.
- Hücre sayısını ve canlılığını belirleyin.
- Hücreleri, kuyuk başına 2,0–2,5 × 10⁵ hücre yoğunluğunda 6 kuyucuklu plakalara ekin.
- Hücreleri, yaklaşık %60–80 konflüenseye ulaşana kadar %5 CO₂ içeren nemlendirilmiş bir inkübatörde, 37 °C'de gece boyunca inkübe edin.
- Gün 0: hTERT mRNA–reaktif komplekslerinin hazırlanması
- Nükleozid modifiyeli hTERT mRNA'nın bir alikvotunu buz üzerinde çözdürün.
- hTERT mRNA'yı, steril RNaz-free bir tüpte (Tüp A) Opti-MEM ile 2 µg/mL nihai konsantrasyona kadar seyreltin.
- Tüp A'ya 0,5–1,0 U/µL nihai konsantrasyona ulaşacak şekilde RNaz inhibitörü ekleyin ve nazikçe karıştırın.
- Transfeksiyon reaktifini, ikinci bir RNaz-free tüpte (Tüp B) 100 ng mRNA başına 0,4–0,6 µL reaktif kullanacak şekilde Opti-MEM ile seyreltin.
- Tüp B'nin içeriğini, nazikçe karıştırarak damla damla Tüp A'ya ekleyin.
- Karışımı oda sıcaklığında 15–20 dk inkübe edin.
- Gün 0: İleri transfeksiyon
- Hücrelerin %60–80 konflüenste olduğunu ve sağlıklı morfoloji sergilediğini doğrulayın.
- Kültür besiyerini aspire edin.
- Hücreleri 1–2 mL önceden ısıtılmış PBS ile bir kez yıkayın.
- Her kuyucuğa 0,5 mL önceden ısıtılmış tam veya serumu azaltılmış besiyeri ekleyin.
- İsteğe bağlı olarak, 10–20 µM nihai konsantrasyona ulaşacak şekilde klorokin ekleyin.
- Adım 6.2.6'da hazırlanan hTERT mRNA–reaktif komplekslerinden 0,5 mL'yi her kuyucuğa ekleyin.
- Komplekslerin eşit dağılması için plakayı nazikçe sallayın.
- Hücreleri %5 CO₂ içeren nemlendirilmiş bir inkübatörde, 37 °C'de 4–6 saat inkübe edin.
NOT: Senesen hücreler için gerekliyse inkübasyon süresini 6–8 saate uzatın. - Transfeksiyon besiyerini aspire edin.
- Her kuyucuğa 2,0 mL taze tam besiyeri ekleyin.
- Bölüm 4'te açıklandığı şekilde transfeksiyon sonrası analizleri gerçekleştirin.
NOT: İleri ve ters transfeksiyon koşullarını karşılaştırırken aynı hTERT mRNA lotunu, transfeksiyon reaktifini ve nominal dozu kullanın.
Sonuçlar
d2EGFP-T2A-hTERT modRNA, destabilize edilmiş bir EGFP (d2EGFP) raporunun, kendi kendini kesen bir T2A peptidi aracılığıyla insan TERT'e bağlandığı hibrit bir açık okuma çerçevesi olarak tasarlanmıştır. Tüm konstrüktların tam nükleotid ve protein dizileri Ek Dosya 1'de verilmiştir. Translasyonel verimliliği ve mRNA stabilitesini artırmak için kodlama dizisi, sentetik bir 5′ çevrilmeyen bölge (UTR) ve insan β-globinin 3′ UTR'si ile çevrelenmiştir (Şekil 1A). Ekspresyon kaseti ayrıca T7 polimeraz prosesivitesini iyileştirmek ve erken transkripsiyon sonlanmasını azaltmak için tasarlanmış sentetik bir enzim stabilize edici dizi (Es) ve sentetik bir transkripsiyon artırıcı dizi (TEs) içermektedir. Bir T7 promotörünün aşağısına klonlanmayı takiben, anti-reverse cap analoğu (ARCA) ve modifiye nükleotidler (m5CTP ve ΨUTP) kullanılarak in vitro transkripsiyon gerçekleştirilmiş, ardından başlığı olan, poliadenile edilmiş, yüksek bütünlüklü d2EGFP-T2A-hTERT modRNA üretmek için enzimatik poli(A) kuyruğu eklemesi (yaklaşık 120–20 nt) yapılmıştır (Şekil 1A).
Otomatik elektroforetik RNA analizi, transkriptin verimli bir şekilde sentezlendiğini doğrulamış ve farklı girdi miktarları genelinde, minimal degredasyon ürünleri ile birlikte beklenen boyutta baskın bir RNA türü olduğunu ortaya koyarak tam uzunlukta modRNA'nın başarıyla üretildiğini göstermiştir (Şekil 1B). Erken senesens aşamasındaki LF1 fibroblastlarının 2 µg/mL d2EGFP-T2A-hTERT modRNA ile transfeksiyonunun ardından, hTERT proteini 24 saat içinde saptanabilir hale gelmiş ve 48–96 saat boyunca yüksek seviyelerde kalmaya devam ederek sentetik transkriptin sürekli translasyona uğradığını göstermiştir (Şekil 1C). Bağlı d2EGFP raporerinin analizi, ters transfeksiyondan sonra güçlü bir floresan sinyal ortaya koyarken, düz transfeksiyon sonrasında önemli ölçüde daha düşük floresans gözlemlenmiştir (Şekil 1D,E). Bu bulgular, erken senesens aşamasındaki LF1 fibroblastlarında ters transfeksiyon yaklaşımının kullanılmasıyla hTERT modRNA'nın iletim ve ekspresyonunun arttığını göstermektedir.
Erken senesen LF1 fibroblastlarının d2EGFP-T2A-hTERT modRNA ile 5 günlük aralıklarla tekrarlanan ileri transfeksiyona (FT) tabi tutulması, monokrom multipleks kantitatif PCR (MMqPCR) ile ölçüldüğü üzere, yalancı transfekte edilmiş kontrollere kıyasla ortalama telomer uzunluğunda (rT/S) kademeli bir artış sağlamıştır (Şekil 2A). rT/S oranı her FT döngüsünden sonra artmış ve istatistiksel anlamlılık *P < 0,05'ten **P < 0,01'e yükselmiştir.
Aynı dozaj programının ters transfeksiyon (RT) kullanılarak uygulanması, telomer uzunluğunda daha belirgin bir artışla sonuçlanmıştır. rT/S oranı her RT döngüsü sonrası artmış ve yalancı transfekte kontrollere kıyasla yüksek düzeyde anlamlı farklara ulaşmıştır (*P < 0.05 ile ****P < 0.001 arası) (Şekil 2B). Üç tedavi döngüsü sonrası FT ve RT'nin doğrudan karşılaştırılması, her iki yaklaşımın da yalancı transfekte kontrollere kıyasla rT/S değerlerini anlamlı şekilde artırdığını göstermiştir; ancak, özdeş dozaj ve zamanlama koşulları altında RT, FT'den daha fazla artış sağlamıştır (*P < 0.05, ***P < 0.001, ****P < 0.01) (Şekil 2C).
Uzun süreli büyüme analizi, hTERT modRNA'nın tekrarlı iletiminin replikatif yaşam süresini uzattığını daha detaylı bir şekilde göstermiştir (Şekil 2D). Bir, iki veya üç tedavi döngüsü alan hücreler, yalancı transfekte kontrol gruplarına kıyasla kademeli olarak daha fazla kümülatif popülasyon katlanması sergilemiştir. Üç tur hTERT modRNA tedavisi alan kültürler, özellikle RT yoluyla, yaklaşık 250 gün boyunca kontrol büyüme eğrilerinden en büyük sapmayı göstermiştir (****P < 0.001'e kadar). Popülasyon katlanması hesaplamaları Ek Dosya 2'de gösterilmektedir.
d2EGFP-T2A-hTERT modRNA ile transfekte edilen erken senesent LF1 fibroblastları, transfeksiyondan 48 sa sonra güçlü TRAP merdivenleşmesi gösterirken; mock ve eGFP-modRNA ile işlem görmüş hücreler sadece arka plan sinyali sergilemiştir, bu da telomeraz aktivitesinin ekzojen hTERT ekspresyonundan kaynaklandığını göstermektedir (Şekil 3A). Isıl ön işlem merdivenleşme paternini ortadan kaldırmış ve böylece assay spesifikliğini doğrulamıştır (Şekil 3B).
Zaman seyri analizi, telomeraz aktivitesinin transfeksiyondan sonra 24 ila 48 saat arasında zirveye ulaştığını ve ardından azalarak 72–96 saat civarında neredeyse bazal seviyelere döndüğünü göstermiştir (Şekil 3C). hTERT modRNA konsantrasyonunun 50'den 3.0 ng/mL'ye çıkarılması, TRAP sinyal yoğunluğunda buna paralel bir artış sağlamış ve doza bağlı telomeraz aktivasyonunu kanıtlamıştır (Şekil 3D).
Yabani tip, katalitik olarak inaktif (CI) ve nükleer lokalizasyon sinyali eksik (ΔNLS) hTERT konstrüktları kullanılarak yapılan fonksiyonel analizler, yalnızca yabani tip hTERT'nin güçlü telomeraz aktivitesi oluşturduğunu göstermiştir. Benzer iletim koşullarına rağmen, hem CI hem de ΔNLS varyantları karşılaştırılabilir bir aktivite indüklemede başarısız olmuştur (Şekil 3E). Bu bulgularla tutarlı olarak, MMqPCR analizi, ortalama telomer uzunluğunda belirgin bir artışın (rT/S ≈ 1,4) yalnızca yabani tip hTERT modRNA alan hücrelerde meydana geldiğini ortaya koymuştur. CI-hTERT, ΔNLS-hTERT veya mock işlem uygulanan hücreler bazal seviyelerde kalmıştır (rT/S ≈ 0,3; ****P < 0,01) (Şekil 3F).
5 günlük aralıklarla hTERT modRNA ile gerçekleştirilen üç ardışık ters transfeksiyon döngüsü, senesans ilişkili β-galaktosidaz pozitif hücrelerin oranını önemli ölçüde azaltmıştır. Pozitif hücrelerin yüzdesi, son transfeksiyondan 15 gün sonra, mock-işlem görmüş kültürlerdeki yaklaşık %85'ten, hTERT-işlem görmüş kültürlerde yaklaşık %40'a düşmüştür (***P < 0.01) (Şekil 4A).
Konfokal immünboyama, üç tur hTERT ters transfeksiyonu uygulanan hücrelerde, sham işlem görmüş kontrollere kıyasla artmış Ki67 ekspresyonu ortaya koyarak proliferatif aktivitenin arttığını göstermiştir (Şekil 4B). RT-qPCR analizi, hTERT tedavisi sonrası yaşlanma ile ilişkili belirteçler olan p16 ve p21'in ekspresyonunun azaldığını daha ayrıntılı olarak göstermiştir. Sham işlem görmüş erken evre senesent hücrelere kıyasla, p16 ekspresyonu yaklaşık 2,3 katdan 0,7 kata, p21 ekspresyonu ise yaklaşık 1 katdan 6 kata düşmüştür (**P < 0,01; ****P < 0,01) (Şekil 4C,D). Ek Şekil 1, yalnızca klorokin (CQ) veya Y-27632 ile yapılan tedavinin, sham transfekte edilmiş hücrelerde p16 veya p21 ekspresyonunu anlamlı düzeyde değiştirmediğini ayrıca göstermektedir. Buna karşın, üç tur hTERT ters transfeksiyonu sırasında CQ ve Y-27632 kombinasyonunun kullanımı, yalnızca hTERT ters transfeksiyonuna veya her bir ajanın tek başına kullanımına kıyasla hem p16 hem de p21 ekspresyonunda en büyük azalmayı sağlamış; tekil ajan tedavileri ise orta düzeyde etkiler oluşturmuştur. Bu bulgular, CQ ve Y-27632'nin kombine kullanımının, hTERT mRNA ters transfeksiyonu sonrası yaşlanma ile ilişkili belirteç ekspresyonundaki azalmayı artırdığını göstermektedir. Birlikte değerlendirildiğinde bu bulgular, tekrarlanan hTERT mRNA ters transfeksiyonunun telomer uzamasını teşvik ettiğini, yaşlanma ile ilişkili belirteçleri azalttığını ve erken senesent LF1 fibroblastlarında proliferatif özellikleri artırdığını kanıtlamaktadır.
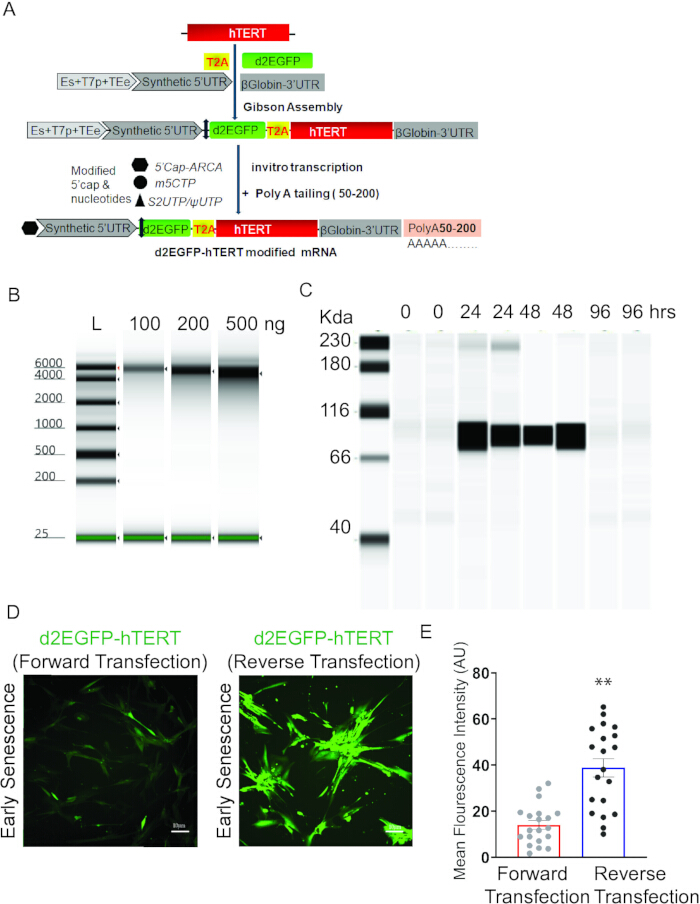
Şekil 1: Erken senese evresindeki LF1 fibroblastlarında d2EGFP‑T2A‑ hTERT mRNA'nın tasarımı, sentezi ve fonksiyonel doğrulanması. (A) hTERT ve destabilize edilmiş EGFP'nin eş zamanlı ekspresyonu için T2A peptitine bağlı d2EGFP kasetini içeren hibrit hTERT mRNA konstrüktünün şematik tasarımı. d2EGFP-T2A-hTERT ORF, insan β globin geninin (HBB) 3' UTR bölgesi ve sentetik 5' UTR bölgesi ile çevrelenmiştir. mRNA, modifiye edilmiş nükleotidler kullanılarak sentezlenmiş ve son olarak bir poli (A) kuyruğu eklenmiştir. (B) ... kullanılarak yüksek bütünlüğe sahip d2EGFP-T2A-hTERT mRNA'sının etkin sentezi in vitro otomatik elektroforetik RNA analizi ile analiz edilen transkripsiyon. (C) ...transfeksiyonu sonrası otomatik kapiler tabanlı bir immunassay kullanılarak hTERT protein ekspresyonunun zaman seyri analizi 2 µg/mL d2EGFP-T2A-hTERT mRNA'sının. (Dİleri transfection (FT) ve ters transfection (RT) arasındaki EGFP ekspresyonu ile değerlendirilen d2EGFP-T2A-hTERT mRNA transfection'ın etkinliği ve ekspresyonu, erken senesen primer diploid fibroblastlarda (LF1) incelenmiştir. Ölçek çubuğu = 10 µm. (E) Doğru veya ters transfeksiyondan sonra eGFP sinyalinin ortalama floresan yoğunluğu (MFI) kantifikasyonu. Her koşul için, 5 biyolojik tekrardan 4 farklı alanı kapsayan toplam 20 bireysel görüntü analiz edilmiştir. Veriler ortalama ± SD olarak sunulmuştur. **P < 0,01; Welch düzeltmeli eşleştirilmemiş t-testi ile değerlendirilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
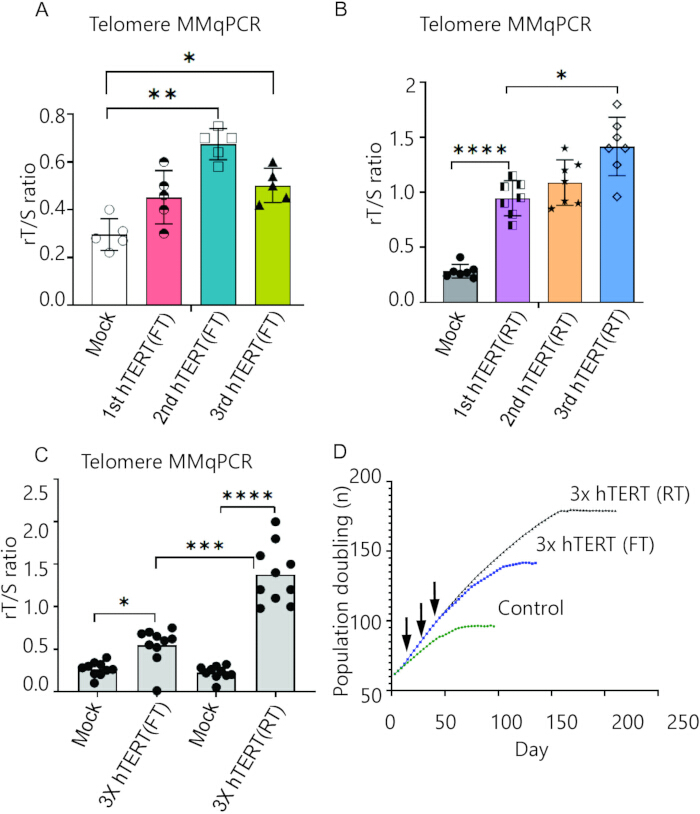
Şekil 2Erken senesen LF1 fibroblastlarında tekrarlanan ileriye yönelik ve tersine hTERT mRNA transfeksiyonu sonrası telomer uzunluğu dinamikleri ve proliferatif yaşam süresi. (AOrtalama telomer uzunlukları (rT/S), Telomere MMqPCR kullanılarak belirlenmiştir. Erken senesans evresindeki fibroblastlar, Populasyon İkiye Katlanma (PD) #76'dan başlayarak 5 günlük aralıklarla art arda üç kez d2EGFP-T2A-hTERT mRNA ile ileri transfeksiyona (FT) tabi tutulmuştur. Hata çubuğu SEM'i göstermektedir; n = 5 biyolojik tekrardır; *P < 0.05, **P < 0,01; yalnızca mock ile işlem görmüş hücrelerle karşılaştırıldığında. (B) şuna benzer (A), erken senesen hücreler Populasyon İkiye Katlanma (PD) #76'dan başlayarak 5 günlük aralıklarla üst üste üç kez d2EGFP-T2A-hTERT mRNA ile transfekte edildiğinde (RT) rT/S değerleri değerlendirildi. Hata çubuğu SEM'i temsil etmektedir; n = 7 biyolojik tekrar; *P < 0.05, ****P < yalnızca mock ile işlem görmüş hücrelerle karşılaştırıldığında 0,001 (C) 5 günlük aralıklarla art arda gerçekleştirilen 3 ileri ve geri transfeksiyondan veya sadece yalancı (mock) uygulamadan sonraki ortalama telomer uzunluğu (rT/S) karşılaştırması. Hata çubuğu SEM'i temsil etmektedir; n = 10 biyolojik replika; *P < 0.05, ***P < 0.001, ****P < 0.0001. (D) ile transfekte edilmiş LF1 fibroblastlarının büyüme eğrileri 2 µg/ml PD# 76'dan başlayarak 5 günlük aralıklarla bir, iki veya üç kez ardışık olarak d2EGFP-T2A-hTERT mRNA veya sadece mock uygulaması. Siyah oklar tedavi zamanlarını göstermektedir. Büyüme eğrileri, her popülasyon üç paralel kültürde yetiştirilmek üzere üç kez tekrarlanmıştır. Biyolojik örnek başına 3 teknik tekrarlanma yapılmış olup veriler ortalama ± SD olarak sunulmuştur. *P < 0.05, **P < 0.01; ****P < Brown-Forsythe ve Welch’in ANOVA testi ile değerlendirildiği üzere 0,01 Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
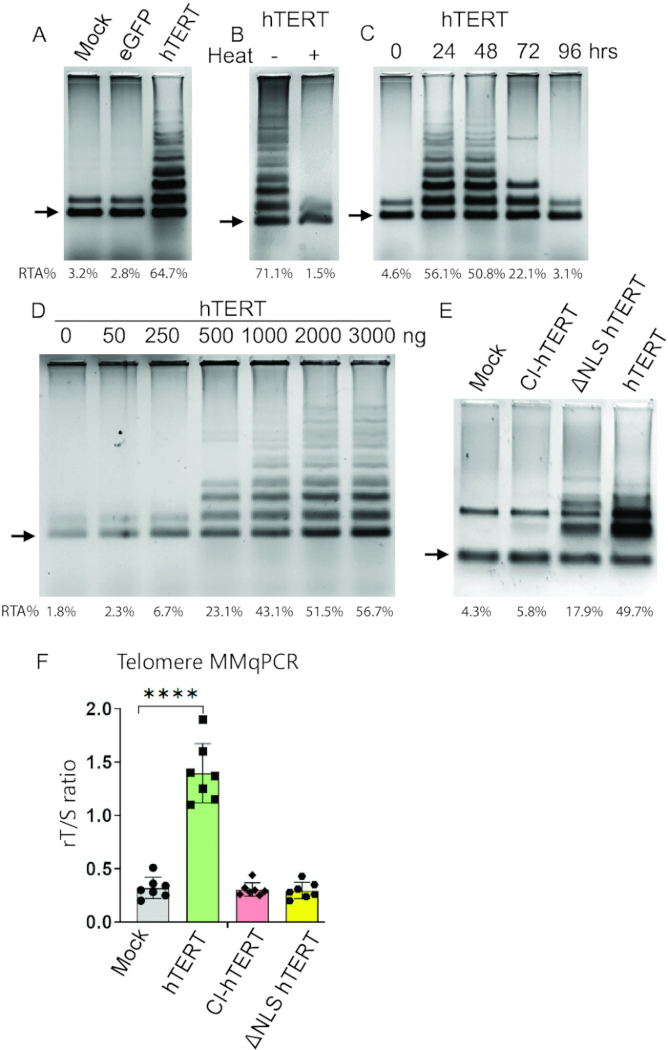
Şekil 3Katalitik olarak aktif, nükleusa lokalize hTERT mRNA'sı, erken senesens aşamasındaki LF1 fibroblastlarında ölçülebilir telomer uzamasını teşvik etmek için tek başına yeterli olan, geçici ve doz bağımlı bir telomeraz aktivite artışını tetikler. (AErken senesans evresindeki hücreler; mock, eGFP veya d2EGFP-T2A-hTERT mRNA ile transfekte edildi. Transfeksiyondan 48 saat sonra 20.0 hücreden hücre ekstraktı hazırlandı ve TRAP analizine tabi tutuldu. Reaksiyon ürünleri native PAGE üzerinde yürütüldü ve SYBR Green ile boyandı.B) TRAP analizi kullanılarak ölçülen ısı aracılı telomeraz inaktivasyonu. (ChTERT mRNA transfeksiyonu sonrası erken senesent LF1 hücrelerinde telomeraz aktivitesinin zaman içindeki analizi, aktivitenin 72 saat içinde bazal seviyeye döndüğünü göstermiş ve bu durum geçici enzim aktivasyonuna işaret etmiştir.DErken senese fazındaki LF1 hücrelerine farklı miktarlarda d2EGFP-T2A-hTERT mRNA'sı (0–3.00 ng/mL) uygulanmış ve doza paralel olarak artan telomeraz aktivitesi gözlemlenmiştir.E) Teslimatı 2 µg/ml TERT, erken senesans evresindeki LF1 hücrelerinde telomeraz aktivitesini artırmıştır. ΔNLS, sitoplazmada görev yapıp çekirdeğe transloke olmadığı için telomer uzamasını tetiklemeden telomeraz aktivitesini kısmen artırırken, CI TERT mRNA'sı bu etkiyi oluşturmamış ve bunun farklı fonksiyonel sonuçlara işaret ettiği görülmüştür.F) Fonksiyonel TERT, nükleer lokalizasyon sinyali eksik (ΔNLS) ve katalitik olarak inaktif (CI) TERT ters transfeksiyonunun, erken senesen LF1 hücrelerinin ortalama telomer uzunlukları (rT/S) üzerindeki etkisi; nükleer yerleşimli katalitik olarak aktif TERT'in telomer uzaması üzerindeki önemini göstermektedir. Hata çubuğu SD'yi temsil etmektedir; n = 7 biyolojik tekrar; ****P < Welch düzeltmeli tek yönlü ANOVA ile değerlendirildiğinde, yalnızca mock işlem görmüş hücrelere kıyasla 0,001 olarak belirlenmiştir. RTA%-Relatif telomeraz aktivitesi (kontrolün %'si) her şeridin altında belirtilmiştir. TRAP örnek merdivenleri ile ITAS bandının (iç kontrol- IC) yoğunluk seviyeleri oranı, her şerit için aşağıdaki formül ile hesaplanmıştır: Aktivite normalize edilmiş = Merdiven yoğunluğu/ IC yoğunluğu ve her örnek, aşağıdaki formül kullanılarak pozitif kontrole göre yüzde olarak normalize edilmiştir (pozitif kontrol; H129 2.50 hücre): Göreceli aktivite (%) = Aktivite normalleştirilmiş (örnek)/ Aktivite normalize edilmiş (referans). Her adımda arka plan çıkarma işlemi uygulandı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
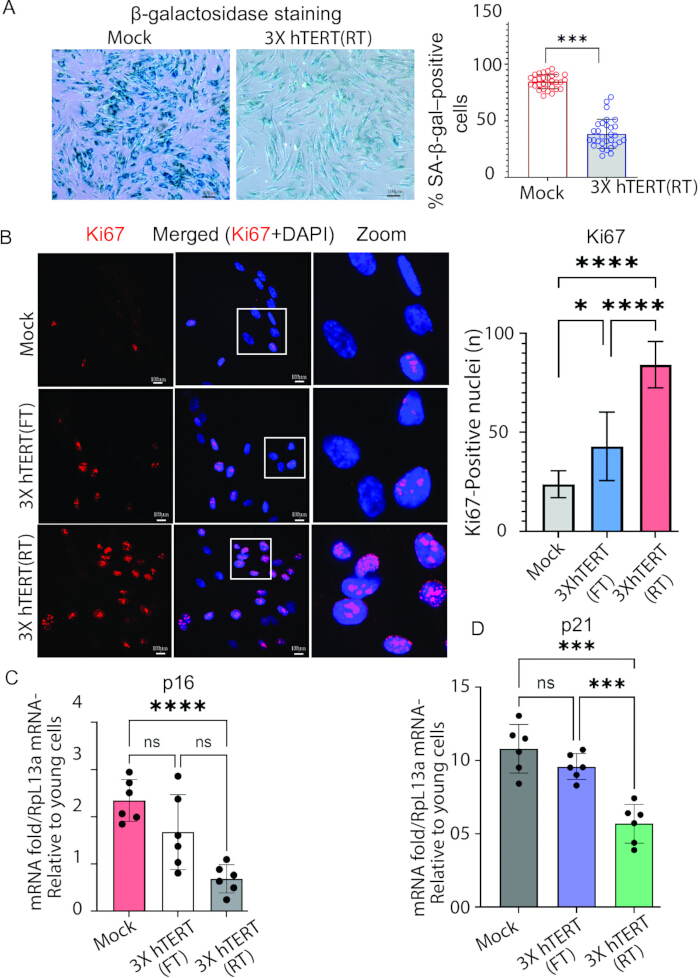
Şekil 4Optimize edilmiş hTERT mRNA ters transfeksiyonu, erken senesens aşamasındaki LF1 fibroblastlarında senesensle ilişkili fenotipleri kısmen tersine çevir ve proliferatif markerları geri kazandırır. (A) Modifiye hTERT mRNA'sının 5 günlük aralıklarla art arda 3 kez transfekte edilmesinin ardından, β-gal eksprese eden erken senesent LF1 hücrelerinin temsilci görüntüleri. Ölçek çubuğu = 100 µmβ-gal ekspresyonu, son transfeksiyondan 15 gün sonra analiz edildi. Deneyler, üç kez şu şekilde gerçekleştirildi: >Örnek başına 10 hücre manuel olarak değerlendirildi.B) Proliferasyon belirteci Ki67 ile boyanmış, erken evre senesent LF1 hücrelerinin temsilci konfokal (20x büyütme) görüntüleri. Ölçek çubuğu = 100 µmhTERT ile 3 tur ters transfeksiyondan sonra Ki-67 ekspresyonunda belirgin artış. Ki67-pozitif çekirdeklerin yüzdesi 3× hTERT (RT) sonrası önemli ölçüde artar. Grafik, Mock-transfekte edilen duruma göre normalize edilmiş Ki67-pozitif çekirdek sayısının ortalama ± standart sapmasını (SD) temsil etmektedir. Her bir durum için, n = 3 biyolojik replikanın her birinden 6 farklı alan seçilerek toplam 18 görüntü incelenmiştir. ****P < 0.0001. (C) RT-qPCR ile değerlendirilen 3× hTERT aracılı kısmi gençleştirme sonrası senesans belirteç ekspresyonu (n = 6). Tüm veriler ortalama ± SD olarak sunulmuştur. **P < 0.01; ****P < Welch düzeltmeli eşleşmemiş t-testi ile değerlendirildiğinde 0,01. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Bileşen | Hacim/Final Konsantrasyon |
| PCR kalıp DNA'sı | 20 –10 ng |
| 10× IVT Tamponu | 2 μL |
| ATP (100 mM) | 2 μL (final konsantrasyon 10 mM) |
| GTP (10 mM) | 1.5 μL (7,5 mM final) |
| CTP (10 mM) | 2 μL (10 mM son konsantrasyon) |
| m1Ψ-5′-TP (10 mM) | 2 μL (10 mM nihai konsantrasyon) (Normal UTP'yi 1:4-2:2 oranında (m1Ψ-5′-TP:UTP) ekleyerek psödo-UTP inklüzyonunu artırabilirsiniz.) |
| ARCA (10 mM) | 4 μL (final 2 mM) |
| RNaz İnhibitörü (40 U/μL) | 0.5 μL (20 U) |
| T7 RNA Polimeraz (50 U/μL) | 2 μL (10 U) |
| Nükleaz içermeyen H₂O | 20 μL |
Tablo 1: Nükleozit-modifiye hTERT mRNA sentezi için in vitro transkripsiyon (IVT) reaksiyonunun bileşimi. ARCA-capped IVT sentezi için kullanılan reaksiyon bileşenleri ve nihai miktarlar listelenmiştir.
| Bileşen | Hacim/Final Konsantrasyon |
| ...ye kadar saflaştırılmış mRNA 5 μg | ≤20 μL |
| 10× Poly(A) Kuyruk ekleme Tamponu | 5 μL |
| ATP (10 mM | 5 μL (1 mM final konsantrasyon) (Zaten tamponun içinde bulunmasına rağmen, ekstra ekleme polia stabilizasyonuna yardımcı olur.) |
| Poly(A) Polimeraz (5 U/μL) | 1 μL (5 U) |
| Nükleaz içermeyen H₂O | Toplamına 50 μL |
Tablo 2: hTERT mRNA'sının post-transkripsiyonel modifikasyonu için kullanılan poly(A)-kuyruklama reaksiyonunun bileşimi. 120–20 nükleotidlik bir poly(A) kuyruğu oluşturulması için gereken reaktif hacimleri ve reaksiyon koşulları gösterilmiştir.
| Parametre | 12 Kuyucuklu Format | 6 Kuyucuklu Format |
| Büyüme Yüzey Alanı | ~3,8 cm² | ~9,5 cm² |
| Kuyu Başına Besiyeri | 1,0 mL | 2,0 mL |
| Hücre Ekim Sayısı | 5× 10⁴–6.5× 10⁴ Hücre/ml | 2,0–2,5 × 10⁵ |
| Ortalama Hücre sayısı (%10 konfluensle) | 5.7× 10⁴–7.2× 10⁴ Hücre/ml | 2,9–3 × 10⁵ |
| mRNA transfeksiyon miktarı | 750 –10 ng | 20–350 ng |
| mRNA transfeksiyon ajanı | 1.5 – 3.0 µL | 4.75 – 7 µL |
| Opti-MEM içindeki mRNA + transfeksiyon ajanının final hacmi | 50 µL | 200 µL |
Tablo 3: 6 kuyucuklu ve 12 kuyucuklu kültür formatlarında hTERT mRNA iletimi için önerilen transfeksiyon parametreleri. İleri ve ters transfeksiyon deneyleri için kullanılan hücre ekim yoğunlukları, mRNA miktarları, transfeksiyon reajanı hacimleri ve kompleks oluşum hacimleri özetlenmiştir.
Ek Şekil 1: Tekrarlanan hTERT mRNA ters transfeksiyonu sonrası yaşlanma ile ilişkili p16 ve p21 ekspresyonu üzerinde klorokin ve Y-27632'nin etkisi. (A) Belirtildiği üzere klorokin (CQ), Y-27632 veya bunların kombinasyonu ile tedavi edilen mock-işlem görmüş ve 3× hTERT ters transfekte (RT) edilmiş LF1 fibroblastlarında p16 mRNA ekspresyonunun kantitatif RT-PCR analizi. (B) Aynı deneysel koşullar altında p21 mRNA ekspresyonunun kantitatif RT-PCR analizi. Transkript seviyeleri RpL13a'ya göre normalize edilmiş ve genç kontrol hücrelerine (PD#12) göreceli olarak ifade edilmiştir. Münferit veri noktaları biyolojik tekrarları temsil etmektedir. Veriler, biyolojik tekrar başına 5 teknik tekrar ile n = 2 biyolojik tekrardan elde edilen ortalamalar ± SD değerlerini temsil etmektedir. İstatistiksel anlamlılık şekilde belirtilmiştir; ns, anlamlı değil. Brown–Forsythe ve Welch'in ANOVA testi ile belirlenen *P < 0.05, **P < 0.01, ****P < 0.01. Kısaltmalar: CQ, klorokin; RT, ters transfeksiyon; Y-27632, Rho-ilişkili protein kinaz (ROCK) inhibitörü.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 1: hTERT ekspresyon konstrüktlerinin DNA ve protein dizileri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 2: Popülasyon katlanması (PD) hesaplaması. Popülasyon katlanmaları (PD), N₀ ekilen hücre sayısı ve Nf hasat edilen canlı hücre sayısı olmak üzere PD = log₂ (Nf/N₀) formülü kullanılarak hesaplanmıştır. Kümülatif PD, pasajlar boyunca PD değerlerinin toplanmasıyla belirlenmiştir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu çalışma, hücresel senesansı proliferatif fizyolojinin küçük bir varyasyonu yerine belirgin bir iletim problemi olarak yeniden çerçeveler ve senesent durumun biyofiziksel ve immünolojik kısıtlamalarına uygun bir telomeraz mRNA transfeksiyon stratejisi geliştirir. Senesent hücreler, katılaşmış, kolesterolce zenginleşmiş membranlar ve azalmış endositik aktivite sergileyerek nükleik asit iletiminin verimliliğinin önünde önemli bir engel oluştururlar. Ters-transfeksiyon yaklaşımını benimseyen bu protokol, senesent hücrelerin membran yeniden modellemesine uğradığı ve artmış membran plastisitesi sergilediği geçici adezyon döneminden yararlanarak, hücre-kompleks temasını potansiyeli artmış bir alım dönemiyle senkronize eder3,4. Temsili sonuçlar, bu stratejinin konvansiyonel ileri transfeksiyona kıyasla hTERT modRNA iletimini ve ekspresyonunu iyileştirdiğini, böylece daha fazla telomer uzamasına ve daha belirgin gençleşme ilişkili fenotiplere yol açtığını göstermektedir.
Yöntemin temel özelliği; senesent hücrelerdeki üç ana engeli, yani yükselmiş doğuştan gelen bağışıklık sinyalizasyonunu, artan RNA yıkımını ve bozulmuş translasyon kapasitesini gidermek için tasarlanmış çok katmanlı bir mRNA mühendisliği stratejisidir23,24,25. Psödouridin ve 5-metilsitidin kullanımı, TLR3, TLR7/8 ve RIG-I sinyal yollarının aktivasyonunu azaltırken aynı zamanda transkript stabilitesini ve translasyon verimliliğini artırır13,26. ARCA kapsınlama ve poli(A) kuyruğu optimizasyonu, transkript stabilitesini ve translasyon çıktısını daha da iyileştirerek güçlü ancak geçici hTERT ekspresyonu sağlar. Önceki çalışmalarla uyumlu olarak, bu modifikasyonlar, ekzojen RNA iletimiyle ilişkili doğuştan gelen bağışıklık aktivasyonunu minimize ederken etkili telomeraz ekspresyonunu destekler.
Protokol ayrıca senesans geçirmiş kültürlerin karakteristik özelliği olan RNaz açısından zengin hücre dışı ortamı da ele almaktadır27. RNA koruması; nükleozid modifikasyonu, lipid kompleks oluşumu ve transfeksiyon öncesinde hemen eklenen RNaz inhibitörü ile artırılmıştır. Ek olarak, ters transfeksiyon zamanlaması, senesans geçirmiş hücrelerin daha yavaş olan yapışma kinetiğine göre ayarlanarak, hücre adezyonu sırasında hücreler ile mRNA-lipid kompleksleri arasındaki etkileşimin uzaması sağlanmıştır. Bu modifikasyonlar, toplu olarak, normalde transfeksiyonu zor olan bir hücre popülasyonunda kargonun başarıyla alınma olasılığını artırmaktadır.
Endozomal kaçış, senesans hücrelerde mRNA iletimi için ikinci bir kritik darboğazı temsil eder. Senesans hücreler, artmış lizozomal içeriğe ve endositozla alınan kargoların yıkıcı bölmelere doğru artmış taşınmasına sahiptir17,28. Transfeksiyon sonrası erken dönemde klorokinle geçici olarak maruz bırakma, endozomal kaçışı teşvik ederek ve hücre içine alınan mRNA'nın lizozomal yıkımını azaltarak fonksiyonel iletimi iyileştirir. Optimal doz ve maruz kalma süresi hücre tipleri arasında farklılık gösterse de, burada sunulan sonuçlar, endozomal kaçışın artırılmasının senesans fibroblastlarda iletim verimliliğini önemli ölçüde iyileştirdiğini göstermektedir.
Fonksiyonel düzeyde, tekrarlanan hTERT modRNA uygulamaları, göreli telomer uzunluğunda kümülatif artışlar sağlamış, replikatif yaşam süresini uzatmış ve yaşlanma ile ilişkili birden fazla fenotipi azaltmıştır. Tekrarlanan hTERT tedavisi alan hücreler, yalancı transfekte edilen kontrollere kıyasla azalmış SA-β-gal aktivitesi, azalmış p16 ve p21 ekspresyonu, artmış Ki67 ekspresyonu ve gelişmiş proliferatif kapasite göstermiştir. Önemli bir nokta olarak, telomeraz aktivitesi geçici kalmış ve transfeksiyondan sonraki birkaç gün içinde neredeyse bazal seviyelere dönmüştür. Bu geçici ekspresyon profili, ölçülebilir biyolojik etkileri teşvik edecek yeterli telomeraz aktivitesini sağlarken kalıcı genetik modifikasyondan kaçınmaktadır. Bununla birlikte, MMqPCR ile elde edilen göreli telomer uzunluğu ölçümlerinin, mutlak telomer uzamasını doğrudan nicelendirmediği unutulmamalıdır. Terminal kısıtlama fragman analizi, kantitatif floresan in situ hibridizasyon, Flow-FISH veya TeSLA metodolojilerini içeren gelecek çalışmalar, hTERT mRNA iletimini takip eden telomer uzunluğu dinamiklerinin daha hassas bir değerlendirmesini sağlayacaktır.
Birkaç kısıtlamanın göz önünde bulundurulması gerekir. Senesent hücre popülasyonları doğası gereği heterojendir ve senesans indüksiyon yöntemine, donör kaynağına ve kültür geçmişine bağlı olarak mRNA iletimine verdikleri yanıtta farklılıklar gösterebilirler. Sonuç olarak, transfeksiyon verimliliği ve gençleştirme sonuçları deneysel sistemler arasında farklılık gösterebilir. Ayrıca, telomeraz reaktivasyonu öncelikle hücresel yaşlanmanın telomer bağımlı yönlerini ele alır ve senesansın tüm karakteristik özelliklerini doğrudan düzeltmez. Başarılı telomer uzamasına rağmen epigenetik sürüklenme, mitokondriyal disfonksiyon, değişmiş proteostaz ve kronik inflamatuar sinyalizasyon gibi yaşlanmaya bağlı değişiklikler devam edebilir29,30. Bu nedenle, bu protokol kapsamlı bir gençleştirme stratejisinden ziyade, telomer kaynaklı senesansı incelemek ve kısmen geri döndürmek için hedeflenmiş bir araç olarak görülmelidir.
Bu protokolde açıklanan parametreler, senesent insan hücreleri için pratik kılavuzlar olarak tasarlanmış olup, yayınlanmış çalışmalardan ve deneysel deneyimlerden elde edilen bilgilerle tekrarlayan optimizasyonlar yoluyla geliştirilmiştir. Hücre yoğunluğu, transfeksiyon reaktanı-mRNA oranı, kompleksleşme süresi ve endozomal kaçış koşulları dahil olmak üzere bazı faktörlerin, hücre tiplerine ve deneysel düzeneklere göre ayarlanması gerekebilir. Bu nedenle araştırmacıların, rapor edilen koşulları evrensel olarak uygulanabilir nihai noktalar olarak değil, optimizasyon için bir başlangıç noktası olarak değerlendirmeleri önerilir.
Özetle, bu protokol, yaşlanmanın fizyolojik özelliklerine göre optimize edilmiş bir ters transfeksiyon stratejisi kullanarak modifiye hTERT mRNA'nın senesent insan hücrelerine iletilmesi için tekrarlanabilir bir çerçeve sunmaktadır. Bu yaklaşım; geçici telomeraz reaktivasyonuna, ölçülebilir telomer uzamasına, replikatif yaşam süresinin uzamasına ve yaşlanma ile ilişkili fenotiplerin kısmen geri döndürülmesine olanak tanır. Gelecekteki çalışmalar, bu stratejinin diğer senesent hücre tiplerine uygulanabilirliğini değerlendirmeli, tamamlayıcı gençleştirme müdahaleleriyle kombinasyon yaklaşımlarını araştırmalı ve in vivo iletim platformlarına aktarımı incelemelidir. Bu haliyle söz konusu yöntem; telomer biyolojisinin, hücresel gençleştirmenin ve yaşlanma araştırmalarındaki senesens mekanizmalarının incelenmesi için değerli bir araç sağlamaktadır.
Açıklamalar
J.M.S., Transposon Therapeutics'in kurucu ortağı ve SAB başkanıdır.
Teşekkürler
Bu çalışma, JS'ye verilen P01 AG051449, R01 AG016694 ve R01 AG078925 numaralı Ulusal Sağlık Enstitüleri (NIH) hibeleri tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Ham's F-10 Besin Karışımı | Thermo Fisher | 11550043 | Hücre kültürü medyumu. |
| 3´-O-Me-m7G(5')ppp(5')G RNA Kep Yapısı Analoğu | New England Biolab | S1411L | Çoğu RNA için kep yapısı stabiliteyi artırır, ekzonükleaz yıkımına karşı duyarlılığı azaltır ve mRNA başlama komplekslerinin oluşumunu destekler. |
| 5-Metil-Sitidin-5´-Trifosfat (5-Metil-CTP) | New England Biolab | N0432S | Modifiye NTP'ler, in vitro transkripsiyon RNA'ları için immünojeniteyi azaltmak amacıyla yaygın olarak kullanılır. |
| 6 Kuyucuklu Plaka | Corning | 351146 | Bağımsız deneysel koşullarda, orta ila büyük hacimdeki adherent veya süspansiyon hücrelerini büyütmek ve işleme tabi tutmak için. |
| Anti-Ki67 antikoru (SP6) | abcam | ab16667 | Ki67 esas olarak proliferasyon halindeki hücrelerde eksprese edilir. |
| Hücresel Senesans Analiz Kiti (SA-beta-gal Boyama) | cellbiolabs | CBA-230 | SA-β-gal boyama analizi ile senesent hücrelerin tanımlanması |
| DNA LoBind 0.5ml Tüpler | Eppendorf | 022431005 | DNA ve RNA'nın herhangi bir kayıp olmadan verimli bir şekilde geri kazanılması için |
| DNA LoBind 1.5ml Tüpler | Eppendorf | 22431021 | DNA ve RNA'nın herhangi bir kayıp olmadan verimli bir şekilde geri kazanılması için |
| DNase I, RNase-free (1 U/μL) | Thermo Fisher | EN0521 | RNase-free DNase I, tek ve çift sarmallı DNA'yı sindiren bir endonükleazdır. |
| E. coli Poly(A) Polimeraz | New England Biolab | M0276S | Escherichia coli'de, Poly(A) Polimeraz I (PAP I), öncelikle RNA moleküllerinin 3' ucuna kalıptan bağımsız olarak adenozin monofosfat (AMP) kalıntılarının eklenmesi için bir katalizör görevi görür. |
| Fetal Bovin Serum | Thermo Fisher | A5256701 | Hücre kültürü serum takviyesi |
| HiScribe T7 ARCA mRNA Kiti | New England Biolab | E2065S | HiScribe T7 ARCA mRNA Kiti (kuyruklama ile), in vitro ortamda ARCA kepli ve poly(A) kuyruklu mRNA'ların hızlı üretimi için tasarlanmıştır. Kepli mRNA'lar, T7 RNA Polimeraz kullanılarak Anti-Reverse Cap Analoğu'nun (ARCA) ko-transkripsiyonel entegrasyonu ile sentezlenir. |
| CleanCap Reagent AG İçeren HiScribe T7 mRNA Kiti | New England Biolab | E2080S | CleanCap Reagent AG içeren HiScribe T7 mRNA Kitleri, reaksiyon başına tipik olarak ≥90 μg verimle bir veya birden fazla transkriptin hızlı ve kolaylaştırılmış üretimini sağlar, |
| LongAmp Hot Start Taq DNA Polimeraz | New England Biolab | M0534S | LongAmp Hot Start Taq DNA Polimeraz, uzun amplikonlarla olağanüstü performans sunar. |
| M-MuLV Ters Transkriptaz | New England Biolab | M0253L | M-MuLV Ters Transkriptaz, kalıp olarak ya RNA (cDNA sentezi) ya da tek sarmallı DNA kullanarak bir primerden başlayan tamamlayıcı bir DNA sarmalı sentezler. |
| Monarch Spin RNA Temizleme Kiti (50 μg) | New England Biolab | T2040L | Monarch® Spin RNA Temizleme Kiti'nin (50 μg) temel işlevi, enzimatik reaksiyonlardan veya ekstraksiyon karışımlarından 50 μg'a kadar yüksek kaliteli RNA'yı saflaştırmak ve konsantre etmektir. |
| NEBuilder HiFi DNA Assembly Master Mix | New England Biolab | E2621L | NEBuilder HiFi DNA Assembly Master Mix, fragman uzunluğu veya uç uyumluluğuna bakılmaksızın birden fazla DNA fragmanının sorunsuz bir şekilde birleştirilmesine olanak tanır. Kullanım kolaylığı, esnekliği ve basit master-mix formatı sayesinde sentetik biyoloji topluluğunun yanı sıra birden fazla fragmanın tek adımda klonlanmasında da fayda sağlar. |
| Opti-MEM - Azaltılmış Serum Medyumu | Thermo Fisher | 31985070 | Lipid-yük kompleks oluşumu sırasında hücre transfeksiyon verimliliğini maksimize etmek için. Memeli hücrelerini yüksek canlılıkta tutarken standart serum takviyesi ihtiyacını azaltan, optimize edilmiş ve kimyasal olarak tanımlanmış bir ortam görevi görür |
| PBS, pH 7.4 | Thermo Fisher | 10010023 | pH 7.4'teki Fosfat Tamponlu Salin'in (PBS) temel fonksiyonel kullanımı, memeli hücreler ve biyolojik moleküller için stabil bir pH ve ozmotik denge sağlamaktır. |
| PCR Şeritleri | Thermo Fisher | AB0776 | PCR şerit tüplerinin (genellikle 8'li veya 12'li şerit formatında) temel fonksiyonel kullanımı, yüksek kapasiteli termal döngüler sırasında küçük hacimli sıvı reaksiyonlarını tutmaktır. |
| Poly-L-Lysine Hidrobromür | Millipore Sigma | P4707-50ML | Hücre yapışması için Poly-L-Lysine (PLL) Hidrobromür'ün temel fonksiyonel kullanımı, yüksek yapışkanlığa sahip, pozitif yüklü bir substrat oluşturmak için negatif yüklü katı yüzeyleri (cam veya plastik gibi) kaplamaktır. |
| Pseudouridine-5´-Trifosfat (Pseudo-UTP- ΨUTP) | New England Biolab | N0433S | Pseudouridine-5´-Trifosfat (Pseudo-UTP), in vitro transkripsiyon RNA'ları için immünojeniteyi azaltmak amacıyla yaygın olarak kullanılır. |
| Ribonükleotid Çözelti Seti | New England Biolab | N0450L | ATP, GTP, CTP ve UTP'den oluşan dört ayrı çözelti |
| ROCK inhibitörü Y-27632 (Dihidroklorür) | Stem cell technologies | 72302 | Y-27632, Rho-ilişkili, coiled-coil içeren protein kinazın (ROCK) hücreye nüfuz edebilen, yüksek etkili ve seçici bir inhibitörüdür. Y-27632, katalitik bölgeye bağlanma için ATP ile yarışarak hem ROCK1'i (Ki = 220 nM) hem de ROCK2'yi (Ki = 300 nM) inhibe eder |
| RT-PCR Derecesinde Su | Thermo Fisher | AM9935 | RT-PCR Derecesinde Suyun (genellikle Nükleazdan Arındırılmış Su olarak adlandırılır) temel fonksiyonel kullanımı, herhangi bir kontaminasyonun örneği bozacağı veya amplifikasyonu inhibe edeceği hassas enzimatik analizler için ultra saf çözücü olarak hizmet etmektir. |
| SUPERase·In RNase İnhibitörü | Thermo Fisher | AM2694 | SUPERase In RNase İnhibitörü, RNase A, B, C, 1 ve T1 dahil olmak üzere en yaygın ve sorunlu RNase'lere kovalent olmayan şekilde bağlanan ve onları inhibe eden, insan dışı kökenli protein tabanlı bir inhibitördür. |
| SYBR Green I Nükleik Asit Jel Boyası | Thermo Fisher | S7563 | SYBR™ Green I Nükleik Asit Jel Boyası'nın temel fonksiyonel kullanımı, agaroz veya poliakrilamid jellerdeki çift sarmallı DNA'yı (dsDNA) görselleştirmek ve kantifiye etmektir. |
| TransIT-mRNA Transfeksiyon Kiti | Mirusbio/ Millipore Sigma | MIR 2250 | Büyük RNA'lar için yüksek verimli, düşük toksisiteli bir transfeksiyon reaktifi |
| TRAPeze Telomeraz Tespit Kiti | Millipore Sigma | S7700 | TRAP (Telomeric Repeat Amplification Protocol) analizi, memeli hücrelerinde ve doku örneklerinde telomeraz aktivitesini tespit etmek ve ölçmek için yaygın olarak kullanılan hassas, PCR tabanlı bir yöntemdir. Üç ana adımdan oluşur: telomerik tekrarların telomeraz tarafından uzatılması, bu ürünlerin PCR kullanılarak amplifikasyonu ve ardından tespiti. |
| Trypsin-EDTA (0.05%), fenol kırmızısı | Thermo Fisher | 25300054 | Rutin hücre pasajlama (subkültür) ve hasat sırasında adherent memeli hücreleri kültür kaplarından ayırmak için. |
Kaynaklar
- Millner A, Atilla-Gokcumen GE. Lipid players of cellular senescence. Metabolites. 2020;10(9):339.
- Hamsanathan S, Gurkar AU. Lipids as regulators of cellular senescence. Front Physiol. 2022;13:796850.
- Das UN. Cell membrane theory of senescence and the role of bioactive lipids in aging and aging-associated diseases and their therapeutic implications. Biomolecules. 2021;11(2):241.
- Shin EY, Soung NK, Schwartz MA, Kim EG. Altered endocytosis in cellular senescence. Ageing Res Rev. 2021;68:101332.
- Park JS, et al. Down-regulation of amphiphysin-1 is responsible for reduced receptor-mediated endocytosis in senescent cells. FASEB J. 2001;15(9):1625-1627.
- Park SC. Functional recovery of senescent cells through restoration of receptor-mediated endocytosis. Mech Ageing Dev. 2002;123(8):917-926.
- Stroupe C. This is the end: regulation of Rab7 nucleotide binding in endolysosomal trafficking and autophagy. Front Cell Dev Biol. 2018;6:129.
- Curnock R, et al. TFEB-dependent lysosome biogenesis is required for senescence. EMBO J. 2023;42(9):e111241.
- Guerrero-Navarro L, Jansen-Durr P, Cavinato M. Age-related lysosomal dysfunctions. Cells. 2022;11(12):1977.
- Tan JX, Finkel T. Lysosomes in senescence and aging. EMBO Rep. 2023;24(11):e57265.
- Rovira M, et al. The lysosomal proteome of senescent cells contributes to the senescence secretome. Aging Cell. 2022;21(10):e13707.
- Kilroy G, Burk DH, Floyd ZE. High-efficiency lipid-based siRNA transfection of adipocytes in suspension. PLoS One. 2009;4(9):e6940.
- Kariko K, Buckstein M, Ni H, Weissman D. Suppression of RNA recognition by Toll-like receptors: the impact of nucleoside modification and the evolutionary origin of RNA. Immunity. 2005;23(2):165-175.
- Freund I, Eigenbrod T, Helm M, Dalpke AH. RNA modifications modulate activation of innate Toll-like receptors. Genes (Basel). 2019;10(2):92.
- Chen H, et al. Branched chemically modified poly(A) tails enhance the translation capacity of mRNA. Nat Biotechnol. 2025;43(2):194-203.
- Alshehri A, Grabowska A, Stolnik S. Pathways of cellular internalisation of liposome-delivered siRNA and effects on siRNA engagement with target mRNA and silencing in cancer cells. Sci Rep. 2018;8(1):3748.
- Paramasivam P, et al. Endosomal escape of delivered mRNA from endosomal recycling tubules visualized at the nanoscale. J Cell Biol. 2022;221(2):e202110137.
- Pandey E, Harris EN. Chloroquine and cytosolic galectins affect endosomal escape of antisense oligonucleotides after Stabilin-mediated endocytosis. Mol Ther Nucleic Acids. 2023;33:430-443.
- Bettinger T, et al. Peptide-mediated RNA delivery: a novel approach for enhanced transfection of primary and post-mitotic cells. Nucleic Acids Res. 2001;29(18):3882-3891.
- Granados-Riveron JT, Aquino-Jarquin G. Engineering of the current nucleoside-modified mRNA-LNP vaccines against SARS-CoV-2. Biomed Pharmacother. 2021;142:111953.
- Hou X, Shi J, Xiao Y. mRNA medicine: recent progresses in chemical modification, design, and engineering. Nano Res. 2024;17(10):9015-9030.
- Ramunas J, et al. Transient delivery of modified mRNA encoding TERT rapidly extends telomeres in human cells. FASEB J. 2015;29(5):1930-1939.
- Majewska J, Krizhanovsky V. Immune surveillance of senescent cells in aging and disease. Nat Aging. 2025;5(8):1415-1424.
- Ajoolabady A, et al. Hallmarks and mechanisms of cellular senescence in aging and disease. Cell Death Discov. 2025;11(1):364.
- Lin J, et al. RNA and protein degradation in the aging process. Cell Signal. 2025;136:112166.
- Anderson BR, et al. Incorporation of pseudouridine into mRNA enhances translation by diminishing PKR activation. Nucleic Acids Res. 2010;38(17):5884-5892.
- Sugawara S, et al. RNaseH2A downregulation drives inflammatory gene expression via genomic DNA fragmentation in senescent and cancer cells. Commun Biol. 2022;5(1):1420.
- Chatterjee S, Kon E, Sharma P, Peer D. Endosomal escape: a bottleneck for LNP-mediated therapeutics. Proc Natl Acad Sci U S A. 2024;121(11):e2307800120.
- Li YY, Tay FR. The epigenetic rejuvenation promise: partial reprogramming as a therapeutic strategy for aging and disease. Ageing Res Rev. 2026;115:103009.
- Zhang W, Qu J, Liu GH, Belmonte JCI. The ageing epigenome and its rejuvenation. Nat Rev Mol Cell Biol. 2020;21(3):137-150.