Diyabetik nefropati (DN), mitokondriyal disfonksiyonu içerir. Transkriptomik, ağ farmakolojisi ve makine öğrenimi kullanarak, Ligustri Lucidi Fructus için CAT, FABP1, MAOA ve MAOB'yi aday mitokondri ile ilişkili biyobelirteçler olarak belirledik. db/db farelerde LLF, CAT ve MAOA'yı yukarı regüle ederek daha ileri mekanistik araştırmaları desteklemiştir.
Araştırma makalesi
Diyabetik Nefropatide Ligustri Lucidi Fructus'un Mitokondri İlgili Aday Biyobelirteçlerinin Belirlenmesi
Bu makalede
Özet
Özet
Mitokondriyal disfonksiyon ve mitokondrilerdeki aşırı oksidatif stres, diyabetik nefropatide (DN) renal tübüler hasarı tetikleyen temel patolojik faktörlerdir. Her ne kadar Ligustri Lucidi Fructus (LLF) geleneksel olarak DN tedavisinde kullanılmaktadır; ancak ilgili mekanizmalar, özellikle mitokondri ile ilişkili genler ve yolaklar ile ilgili olanlar, hala yeterince anlaşılamamıştır. Bu çalışmada, DN ile ilişkili farklı eksprese edilen genleri (DEG'ler) belirlemek için GSE142025 veri setinin diferansiyel ekspresyon analizi kullanılmıştır. Özellik genleri, dört makine öğrenimi modelinin çıktılarının çapraz referanslanmasıyla seçilmiştir. Her iki veri setinde de anlamlı diferansiyel ekspresyon ve tutarlı ekspresyon paternleri gösteren genler, alıcı işletim karakteristiği (ROC) eğrisi analizi ile daha ileri düzeyde değerlendirilmiştir. Eğri altı alanı (AUC) > Her iki veri setinde de 0,7 değeri aday biyobelirteçler olarak tanımlanmıştır. Fonksiyonel zenginleştirme, immün infiltrasyon, ağ oluşturma ve moleküler kenetlenme analizleri gerçekleştirilmiştir. Kan glukozu, idrar mikroalbümin, histopatoloji ve aday biyobelirteçlerin RT-qPCR ekspresyonlarını değerlendirmek için bir DN fare modeli kullanılmıştır. Katalaz ve MAOA anlamlı düzeyde artış göstermiştir in vivoAday biyobelirteçler; ribozom fonksiyonu, valin, lösin ve izölösin yıkımı, sitokin-sitokin reseptör etkileşimleri ve peroksizomlarla ilişkili yolaklarda zenginleşmişti. Bu biyobelirteçler, CD8+ T hücreleri ve aktive olmuş mast hücreleri ile negatif; aktive olmuş NK hücreleri ve naïve B hücreleri ile pozitif korelasyon gösterdi. Taksifolin, beta-sitosterol ve eriodiktiyol, aday biyobelirteçlerle -5 kcal/mol'in altında bağlanma enerjileri sergiledi. CAT ve MAOA, daha ileri mekanistik incelemeler gerektiren gelecek vaat eden adaylardır.
Giriş
Dünya genelinde son evre böbrek yetmezliğinin önde gelen nedeni olan diyabetik nefropati (DN), diabetes mellitus'un en yaygın komplikasyonlarından biridir. Patolojik olarak, hem glomerüler hem de tübüler kompartmanlarda aşırı hücre dışı matris birikiminin yanı sıra intrarenal kan damarlarının kalınlaşması ve sklerozu ile karakterizedir2. DN genellikle proteinüri ve hipertansiyon ile ilişkilendirilir3. Gelişimi; vasküler endotel hücre hasarı, şiddetlenmiş inflamatuar yanıt ve uzamış hiperglisemi sonucu artan oksidatif stres ile yakından bağlantılıdır4. DN insidansı, özellikle orta yaşlı ve yaşlı diyabetik bireyler arasında dünya genelinde artmaktadır. Hastalık ilerledikçe, son evre böbrek yetmezliğine ve hatta kardiyovasküler komplikasyonlara yol açarak hastaların yaşam kalitesini ve prognozunu önemli ölçüde bozabilir5. DN için tanısal ve terapötik yaklaşımlardaki ilerlemelere rağmen, tanı için erken ve doğru aday biyobelirteçler hala belirlenememiştir ve patolojik süreçleri geri çevirmeye yönelik etkili tedavi stratejileri hala eksiktir. Bu nedenle, yeni ve hedeflenmiş anti-DN ilaçların geliştirilmesine acil ihtiyaç vardır.
Mitokondriler; hücresel ve organizmal stabiliteyi korumak için gerekli olan hücresel biyoenerjetik, metabolik öncül sentezi, kalsiyum homeostazı, reaktif oksijen türleri (ROS) üretimi, immün sinyalleme ve apoptoz için kritiktir6. Hücrenin enerji santralleri olan mitokondriler; glikoliz, trikarboksilik asit döngüsü ve oksidatif fosforilasyon gibi temel süreçlerde merkezi bir rol oynar7. Obezite, Krebs döngüsünü ve mitokondriyal solunum zincirini bozarak mitokondriyal disfonksiyona ve artan ROS üretimine yol açar. Mitokondriyal solunum zincirindeki yükselmiş ROS seviyeleri, obezite ile ilişkili inflamatuar yanıtı şiddetlendiren ve apoptozu teşvik eden oksidatif stresi tetikleyebilir8. Güncel araştırmalar; enerji metabolizmasındaki bozulmalar, aşırı ROS üretimi ve artan apoptoz sinyallemesi dahil olmak üzere, mitokondriyal disfonksiyonun DN patogenezindeki ve progresyonundaki önemli rolünü vurgulamıştır9. Kronik mitokondriyal disfonksiyon, böbrek hastalığının progresyonunu hızlandırır10. Bu nedenle, mitokondriyal fonksiyonun iyileştirilmesi, DN'ye karşı kritik bir koruyucu strateji olabilir.
Ligustri Lucidi Fructus (LLF), karaciğer ve böbrek besleyici özelliklerinin yanı sıra saçları koyulaştırma ve görme yetisini iyileştirme kabiliyetiyle bilinen Luteaceae ailesine ait kurutulmuş, olgun bir meyvedir. LLF'den ekstrakte edilen doğal bir heteropolisakkarit tanımlanmış ve bunun böbrekleri fibrozisten koruma potansiyeli ortaya çıkarılmıştır1. Son yıllarda, LLF'nin DN tedavisindeki kullanımına artan bir ilgi gösterilmiş ve dikkate değer renoprotektif etkiler kanıtlanmıştır11,12,13. Ayrıca, LLF ile mitokondri arasındaki karmaşık ilişki kapsamlı bir şekilde araştırılmış ve doğrulanmıştır. Özellikle bir çalışma, LLF'nin AMPK sinyal yolu aktivasyonu yoluyla mitokondriyal fonksiyonu modüle ederek faydalı etkiler gösterdiğini ortaya koymuştur14. Bu mekanizma, mitokondrileri oksidatif stresin neden olduğu hasara karşı etkili bir şekilde korur. Bu bulgular, hücresel enerji metabolizmasının sürdürülmesinde ve hücrelerin oksidatif strese karşı direncini artırmada LLF'nin hayati rolünü daha da vurgulamaktadır. Ancak, özellikle mitokondriyal fonksiyonun geri kazanımıyla ilgili kesin terapötik mekanizma hala yeterince anlaşılamamıştır.
Bu çalışmanın amacı, LLF'nin DN'deki mitokondriyal fonksiyon üzerindeki terapötik etkisinin altında yatan biyolojik mekanizmaları aydınlatmaktır. LLF'nin böbrek koruyucu etkileriyle ilişkili aday biyobelirteçleri belirlemek için, transkriptomik veriler ve aktif bileşen bilgileri entegre edilerek biyoinformatik araçlar kullanılarak genel veri tabanları taranmıştır. İmmün infiltrasyon, klinik özelliklerle ilişkilendirme, m6A RNA modifikasyonu, fonksiyonel zenginleştirme, düzenleyici ağ oluşturma ve moleküler kenetlenmeyi içeren ileri analizler, bu aday biyobelirteçlerin DN tedavisi sırasında mitokondriyal fonksiyonun düzenlenmesinde merkezi bir rol oynadığını göstermiştir. In vivo doğrulama, bunların önemini daha da teyit etmiştir. Bu kapsamlı analiz, LLF'nin DN'yi tedavi etme mekanizmalarına dair anlayışımızı derinleştirmekte ve mitokondriyal disfonksiyon temelli yeni terapötik hedeflerin geliştirilmesi için sağlam bir temel sağlamaktadır.
Protokol
Veri toplama
DN ile ilişkili olan GSE142025 ve GSE96804 veri setleri için gen ekspresyon matrisi ve ilgili klinik veriler, Gene Expression Omnibus (GEO) veri tabanından (https://www.ncbi.nlm.nih.gov/geo/) alındı15. Eğitim seti (GSE142025), GPL20301 platformu kullanılarak sekanslanan 27 DN'li hasta ve dokuz kontrolden alınan böbrek dokusu örneklerini içermekteydi. Doğrulama seti (GSE96804), GPL17586 platformu kullanılarak işlenen 41 DN'li hasta ve 20 kontrole ait sekanslama verilerinden oluşmaktaydı. Her iki veri seti de böbrek dokusuna odaklanmaktadır; GSE96804 veri seti özellikle böbreğin birincil filtrasyon birimi olan glomerulü incelemektedir (Şekil 1). GSE142025 veri seti (eğitim seti), tüm böbrek dokusu örneklerinden oluşmakta ve DN'nin transkriptomik manzarasına dair kapsamlı bir genel bakış sunmaktadır. Diğer yandan GSE96804 veri seti (doğrulama seti), özellikle glomerüler filtrasyon hasarının birincil bölgesi olan glomerüler dokuya odaklanmaktadır. Platform ve doku farklılıkları nedeniyle bu iki veri seti doğrudan birleştirilmediğinden, grup etkisi (batch effect) düzeltmesi uygulanmamıştır. Bunun yerine, veri setleri arası doğrulama bağımsız olarak gerçekleştirilmiştir. Her iki veri setinde tutarlı yönlü değişimler gösteren ve eğri altında kalan alan (AUC) değeri 0,7'den büyük olan genler, farklı böbrek kompartmanları arasındaki genelleştirilebilirliği destekleyen güçlü adaylar olarak seçilmiştir.
MitoCarta3.0 veri tabanından (https://www.broadinstitute.org/mitocarta) toplam 1.136 mitokondri ile ilişkili gen (MRG) çıkarılmıştır. LLF'nin aktif bileşenleri, ≥30% oral biyoyararlanım (OB) eşiği ve ≥0.18 ilaç benzerliği (DL) eşiği temel alınarak Geleneksel Çin Tıbbı Sistem Farmakolojisi (TCMSP) veri tabanı (http://sm.nwsuaf.edu.cn/lsp/tcmsp.php) kullanılarak öngörülmüştür. Ardından, aktif bileşenler için potansiyel hedef genler Swiss Target Prediction veri tabanı (http://www.swisstargetprediction.ch/) kullanılarak öngörülmüştür.
Diferansiyel ekspresyon analizi
GSE142025'in (DN ile kontrol grubu) diferansiyel ekspresyon analizi, anlamlılık kriterleri P.adj < 0.05 ve |log2FoldChange| > 0.5 olarak belirlenerek limma paketi (v3.54.1) kullanılarak gerçekleştirilmiştir16. Volcano grafikleri ve ısı haritaları, sırasıyla ggplot2 (v 3.3.6) ve ComplexHeatmap (v 2.14.0) paketleri kullanılarak görselleştirilmiştir17,18. DEG'ler, MRG'ler ve aktif bileşenlerin potansiyel hedef genleri kesiştirilmiş ve örtüşen genler aday genler olarak tanımlanmıştır. Aktif bileşenleri ve aday genleri birbirine bağlayan ağ, Cytoscape yazılımı (v 3.9.0) kullanılarak oluşturulmuştur19.
Fonksiyonel zenginleştirme analizi ve protein-protein etkileşim (PPI) ağı oluşturma
Aday genlerin biyolojik fonksiyonlarını ve ilişkili sinyal yollarını araştırmak amacıyla, clusterProfiler paketi (v 4.6.2) kullanılarak Gen Ontolojisi (GO) ve Kyoto Gen ve Genom Ansiklopedisi (KEGG) zenginleştirme analizleri gerçekleştirilmiştir (P.adjust < 0.05). Ardından, PPI ilişkilerini belirlemek için aday genler STRING veri tabanına (https://cn.string-db.org/) girilmiş (güven düzeyi ≥ 0.4) ve Cytoscape (v 3.9.0) kullanılarak bir PPI ağı oluşturulmuştur20.
Makine öğrenimi
GSE142025 veri setine dayalı olarak; rastgele orman (RF), k-en yakın komşu (KNN), kısmi en küçük kareler (PLS) ve radyal tabanlı çekirdekli destek vektör makinesi (SVM) dahil olmak üzere dört makine öğrenimi algoritması, caret paketi (v6.0-93) kullanılarak uygulanmıştır. Önceki analizde tanımlanan aday genler tahmin değişkenleri olarak, hastalık durumu (DN veya kontrol) ise sonuç değişkeni olarak kullanılmıştır. KNN modeli için, tuneLength = 10 olacak şekilde trainControl fonksiyonu kullanılarak 10 katlı çapraz doğrulama uygulanmıştır. RF modeli 20 ağaçla (ntree = 20) kurulmuştur; PLS ve SVM modelleri ise orijinal caret iş akışında uygulanan ayarlar kullanılarak kurulmuştur.
Model artık dağılımları DALEX paketi (v2.4.3) kullanılarak değerlendirildi. Ardından, kayıp fonksiyonu olarak ortalama karekök hata (RMSE) belirlenerek DALEX variable_importance fonksiyonu ile permütasyon tabanlı değişken değerlendirmesi gerçekleştirildi. Elde edilen dropout_loss, ilgili değişkenin permütasyonundan sonra elde edilen RMSE değerini temsil eder21,2. Orijinal analitik iş akışında, tüm modellerde dropout kaybı < 0.281 olan değişkenler tutuldu ve dört modelin tamamında ortak olan genler, sonraki doğrulama aşamaları için konsensüs özellik genleri olarak tanımlandı.
Dört makine öğrenimi modeli, nihai bir klinik sınıflandırıcı oluşturmaktan ziyade öncelikle özellik önceliklendirmesi için kullanılmıştır. Buna bağlı olarak, tanısal ayrım daha sonra hem keşif hem de doğrulama veri setlerinde ROC analizi kullanılarak bireysel gen düzeyinde değerlendirilmiştir.
Aday biyobelirteçlerin belirlenmesi
GSE142025 ve GSE96804'te, DN ve kontrol örnekleri arasındaki özellik genlerinin ekspresyon farkları Wilcoxon testi kullanılarak değerlendirilmiştir. Sadece anlamlı diferansiyel ekspresyona (P < 0.05) sahip olan ve her iki veri setinde uyumlu ekspresyon trendleri gösteren genler, alıcı işletim karakteristiği (ROC) eğrisi analizi için seçilmiştir. ROC eğrilerinin oluşturulması ve eğri altındaki alanın (AUC) hesaplanması için pROC paketi (v1.18.0) kullanılmış olup, her iki veri setinde AUC > 0.7 değerini gösteren genler aday biyobelirteçler olarak sınıflandırılmıştır23.
Gen seti zenginleştirme analizi (GSEA)
Aday biyobelirteçlerle ilişkili biyolojik fonksiyonlar ve sinyal yolları, GSE142025 veri seti üzerinde GSEA kullanılarak daha ayrıntılı şekilde incelenmiştir. İlk olarak, aday biyobelirteçlerin diğer tüm genlerle olan Spearman korelasyon analizi psych paketi (v2.2.9) kullanılarak gerçekleştirilmiştir.24Korelasyon katsayıları hesaplanmış ve (yüksekten düşüğe doğru) sıralanmıştır. Referans gen seti olarak Molecular Signatures Database (MSigDB, https://www.gsea-msigdb.org/gsea/msigdb/) üzerinden c2.cp.kegg.v2023.1.Hs.symbols.gmt kullanılmıştır. Ardından, clusterProfiler paketinin (v4.6.2) kullanımıyla, sıralanan genlerin arka plan gen setindeki zenginleşmesini değerlendirmek amacıyla GSEA gerçekleştirilmiştir. Çoklu test düzeltmesi uygulanmıştır. aracılığıyla FDR yöntemi ve düzeltilmiş P-değerler (şöyle belirtilmiştir: P.adjust) değerleri, şu durumda anlamlı kabul edildi: < 0.05.
m6A modifikasyon analizi
Aday biyobelirteçlerin RNA metilasyon modifikasyonlarını incelemek için, m'yi öngörmek amacıyla SRAMP veri tabanı (http://www.cuilab.cn/sramp/) kullanılmıştır.6Aday biyobelirteçlerin ikincil yapıları içindeki yüksek güvenilirlikli pozisyonlara odaklanılarak modifikasyon bölgeleri belirlenmiştir. Ardından, |HepG2 (shRNA)| kullanılarak aday biyobelirteçlerle etkileşime giren m6A-modifiye proteinlerin tanımlanması için ENCORI veri tabanından (https://starbase.sysu.edu.cn/) yararlanılmıştır. > Kilit proteinleri taramak için 1 parametre kullanıldı. Ardından, kilit proteinler ile aday biyobelirteçler arasındaki etkileşim olasılığını tahmin etmek için RPISeq veri tabanı (http://pridb.gdcb.iastate.edu/RPISeq/) kullanıldı. RF ve SVM sınıflandırıcı tahmin skorlarını oluşturmak için her ikisinin RNA dizileri düz metin formatında yüklendi. Skor 0,5'i geçtiğinde etkileşim anlamlı kabul edildi.25SRAMP analizi, m6A bölgesi tahmini için ‘High’ eşiği, ‘Transcript’ modu ve varsayılan parametreler kullanılarak gerçekleştirilmiştir. ENCORI analizi, ‘HepG2 (shRNA)’ parametresi ile ‘miRNA-mRNA’ etkileşim fonksiyonu kullanılarak yapılmıştır. > 1. RPISeq analizi, varsayılan parametrelere sahip RF sınıflandırıcı kullanılarak gerçekleştirilmiştir; skorlar > 0,5 pozitif etkileşime işaret etmektedir. Bunlar hesaplamalı öngörülerdir; böbrek dokusundaki m6A modifikasyonunun veya RNA-protein etkileşimlerinin deneysel kanıtları değildir. HepG2 shRNA kriteri, ENCORI'nin önceden hesaplanmış veri setlerinden türetilmiştir ve böbreğe özgü düzenlemeyi yansıtmayabilir.
İmmün infiltrasyon analizi
GSE142025'teki hem kontrol hem de DN örneklerinde 2 immün hücre tipinin oranlarını tahmin etmek için CIBERSORT algoritması uygulanmış ve sonuçlar ggplot2 paketi (v3.3.6) kullanılarak oluşturulan bir ısı haritası ile görselleştirilmiştir26. CIBERSORT, LM2 imza matrisi kullanılarak, 1.0 permutasyon ile ve (mikrodiziler için önerildiği üzere) kuantil normalizasyonu devre dışı bırakılarak çalıştırılmıştır. CIBERSORT p < 0.05 olan örnekler ileri analizler için saklanmıştır. CIBERSORT, immün hücre fraksiyonlarını dökme (bulk) böbrek dokusu ekspresyonundan tahmin eder; bu yöntem kompartman spesifik infiltrasyonu (örneğin, glomerüler ile tubulointerstisyel arası) çözemez ve infiltre olan lökositleri resident immün hücrelerden ayıramaz. Bu nedenle, bildirilen korelasyonlar doku düzeyindedir ve uzamsal yöntemlerle doğrulanmalıdır. Diferansiyel bolluğa sahip immün hücreler ile aday biyobelirteçler arasındaki Spearman korelasyon analizi psych paketi kullanılarak gerçekleştirilmiştir.
Ağların oluşturulması ve moleküler kenetlenme
Aday biyobelirteçlerle etkileşime giren mikroRNA'lar (miRNA'lar), miRNet veri tabanı (https://www.mirnet.ca) kullanılarak öngörülmüştür. Ardından, belirlenen miRNA'ları hedefleyen uzun kodlamayan RNA'lar (lncRNA'lar), TarBase (http://www.diana.pcbi.upenn.edu/tarbase) ve starbase (http://starbase.sysu.edu.cn/) veri tabanları aracılığıyla öngörülmüştür. Ağ oluşturma için her iki veri tabanında ortak olan lncRNA'lar seçilmiştir. Daha sonra Cytoscape yazılımı kullanılarak bir lncRNA-miRNA-mRNA düzenleyici ağı kurulmuştur. Aday biyobelirteçleri hedefleyen potansiyel aktif bileşenler, bir aktif bileşen-biyobelirteç ağı oluşturmak üzere seçilmiştir. Ek olarak, aktif bileşenler, aday biyobelirteçler ve GSEA'da belirlenen yolaklar, bir aktif bileşen-biyobelirteç-yolak ağı oluşturmak amacıyla Cytoscape'e dahil edilmiştir.
Potansiyel aktif bileşenler ile aday biyobelirteçler arasındaki bağlanma afinitesini değerlendirmek için moleküler docking analizi gerçekleştirilmiştir. Biyobelirteç proteinlerinin 3D yapıları, PDB dosya formatında Research Collaboratory for Structural Bioinformatics Protein Data Bank (RCSB PDB, https://www.rscb.org/pdb) üzerinden temin edilmiştir. Potansiyel aktif bileşenlerin 2D yapıları, PubChem veri tabanından (http://pubchem.ncbi.nlm.nih.gov) SDF formatında alınmıştır. Moleküler docking, CB-Dock platformu (http://clab.labshare.cn/cb-dock/php/blinddock.php) kullanılarak yürütülmüştür. -5 kcal/mol'den düşük bir bağlanma enerjisi, güçlü bir bağlanma afinitesine işaret etmiştir27.
Ligustri Lucidi Fructus hazırlama ve kimliklendirme
Burada, Ligustri Lucidi Fructus (LLF), Ligustrum lucidum W. T. Aiton (Oleaceae) bitkisinin kurutulmuş olgun meyvelerini ifade etmektedir. Botanik materyal, Çin Farmakopesine göre kimliklendirilmiş olup, 20240506, 20240911, 20241103 numaralı voucher örnekleri Shanxi Geleneksel Çin Tıbbı Üniversitesi'ne teslim edilmiştir.
Dekoksiyon hazırlığı için, nitelikli LLF dilimlerinin 20 g'ı, oda sıcaklığında 30 dk boyunca 1.0 mL distile suda bekletildi. Karışım şiddetli bir şekilde kaynatıldı ve ardından 60 dk boyunca kısık ateşte kaynatılmaya devam edildi. Filtrat toplandı ve geride kalan bitki materyalleri, başka bir 1.0 mL distile su ile 60 dk boyunca tekrar dekoksiyona tabi tutuldu. İki filtrat birleştirildi, filtrelendi, santrifüj edildi ve indirgenmiş basınç altında konsantre edilerek 1 g ham ilaç/mL nihai stok konsantrasyonu (toplam hacim 10 mL) elde edildi. Hazırlanan dekoksiyon, kısa süreli kullanım için 4 °C'de veya uzun süreli saklama için −20 °C'de muhafaza edildi. Deneysel güvenilirliği ve tekrarlanabilirliği sağlamak amacıyla, LLF'nin ve dekoksiyonunun kalitesi Çin Farmakopesi standartlarına göre titizlikle tanımlandı ve doğrulandı.
Kalitatif tanımlama için ince tabaka kromatografisi uygulanmıştır. Kısaca, hazırlanan dekoksiyonun uygun bir hacmi santrifüjlenmiş ve süpernatan metanol ile ekstrakte edilmiştir. Filtrasyonun ardından, numune çözeltisi ve specnuezhenide referans standart çözeltisi aynı silika jel G plakasına damlatılmıştır. Geliştirme, kurutma ve ultraviyole ışık altında inceleme işlemlerinden sonra, numune çözeltisinin lekesi referans bileşik ile tutarlı renk ve konum göstermiş, böylece LLF'nin karakteristik biyoaktif bileşeninin varlığı doğrulanmıştır.
Kantitatif kalite kontrolü için yüksek performanslı sıvı kromatografisi deteksiyonu gerçekleştirilmiştir. Analiz, mobil faz olarak metanol–su kullanılan bir C18 kolonu ile yapılmıştır. Deteksiyon dalga boyu 24 nm olarak ayarlanmıştır. Dekoksiyondaki specnuezhenide içeriği, standart eğriye dayanarak belirlenmiştir. Sonuçlar, hazırlanan dekoksiyonun kimyasal bileşiminin stabil ve homojen olduğunu göstermiş ve hayvan müdahale deneyi boyunca tutarlı ilaç kalitesi sağlamıştır.
Hayvan deneyleri
On iki adet SPF sınıfı erkek db/db fare (8-9 haftalık) ve yaşla uyumlu altı adet db/m fare, Shanxi Geleneksel Çin Tıbbı Üniversitesi'nin SPF hayvan tesisinde tutulmuştur. Deneylerden önce hayvanlar, 12 saat ışık/12 saat karanlık döngüsü altında 7 gün boyunca adapte edilmiştir. ad libitum gıda ve suya erişim. Çalışma, Shanxi Geleneksel Çin Tıbbı Üniversitesi Etik Kurulu tarafından onaylanmıştır (Onay No. 2022DW167). Belirtiler gösteren hayvanlar >Vücut ağırlığının %20'sini kaybeden, moribund duruma gelen veya yiyecek ve suya erişemeyen fareler, planlanan çalışma bitiş noktasından önce insani yöntemlerle ötanize edilmiştir. Çalışmanın sonunda, geri kalan tüm fareler, kurum protokollerine uygun olarak intraperitonal pentobarbital sodyum enjeksiyonu ve ardından servikal dislokasyon ile ötanize edilmiştir.
Alıştırma dönemini takiben, db/db farelerde DN modelinin oluşturulduğu, kuyruk veni kan glikoz seviyesinin ≥ 16 mmol/L olması ve pozitif idrar mikroalbumin test şeridi ile belirtilen mikroalbüminüri ile doğrulanmıştır. DN modelinin başarıyla oluşturulmasının ardından, db/db fareler rastgele iki gruba (grup başına n = 6) ayrılmıştır: DN model grubu (DN) ve LLF tedavi grubu (Treatment). Ayrıca, kontrol grubu (Control) olarak db/m fareler (n = 6) kullanılmıştır. Dozaj, diyabetik sıçanlarda LLF ile yapılan önceki farmakodinamik çalışmalara dayanarak seçilmiş ve vücut yüzey alanı normalizasyonu kullanılarak insan eşdeğer dozuna dönüştürülmüştür28. Kontrol ve DN gruplarına distile su verilirken, tedavi grubu 8 hafta boyunca 3.5 g/kg LLF almıştır. 8 haftalık uygulamadan sonra, sonraki testler için serum, idrar ve böbrek dokusu toplamak amacıyla tüm fareler ötanize edilmiştir.
Kan ve idrar göstergeleri
Serum glukoz seviyeleri tam otomatik bir Kan Biyokimya Analizörü kullanılarak analiz edildi. İdrardaki mikroalbümin konsantrasyonu kit talimatlarına göre ölçüldü (Ek Dosya 1).
Fare böbrek dokularının patolojik gözlemi
Böbrek dokuları histopatolojik inceleme için işlendi. %4 paraformaldehit ile fikse edildikten sonra dokular yıkandı,yıkandı,dehidre edildi,parafine gömüldü ve kesitleri alındı. Ardından hematoksilen ve eozin (HE) boyaması yapıldı ve patolojik değişiklikleri değerlendirmek için boyalı kesitler optik mikroskop altında incelendi.
Ters transkripsiyon kantitatif polimeraz zincir reaksiyonu (RT-qPCR)
Fare böbrek dokusundaki aday biyobelirteçlerin ekspresyonunu belirlemek için RT-qPCR kullanılmıştır. Toplam RNA, üretici talimatlarına göre ekstrakte edilmiş, ardından RNA konsantrasyonu ve kalitesi değerlendirilmiştir (Tablo 1). Ekstrakt RNA'dan, cDNA Sentez Kiti kullanılarak cDNA sentezlenmiştir. Amplifikasyon, şurada listelenen primer çiftleri ile gerçekleştirilmiştir: Tablo 1, kullanarak GAPDH referans gen olarak kullanılmıştır. Göreceli ekspresyon seviyeleri 2 ile hesaplanmıştır−ΔΔCt yöntem13,26.
İstatistiksel analiz
Tüm istatistiksel analizler, ilgili deneysel prosedürler için gerekli yazılımlarla birlikte R yazılımı (versiyon 4.2.2) kullanılarak gerçekleştirilmiştir. Aksi belirtilmedikçe, tüm istatistiksel testler çift yönlü yapılmış ve farklar P < 0.05 değerinde istatistiksel olarak anlamlı kabul edilmiştir. Transkriptomik diferansiyel ekspresyon analizi limma paketi kullanılarak gerçekleştirilmiştir. Ayarlanmış P < 0.05 ve 0.5'ten büyük mutlak log2 kat değişim değerine sahip genler, diferansiyel eksprese olmuş olarak tanımlanmıştır.
Bağımsız DN ve kontrol örnekleri arasındaki aday gen ekspresyonlarının karşılaştırılması için, orijinal analitik iş akışında belirtildiği yerlerde parametrik olmayan Wilcoxon sıra toplamı testleri kullanılmıştır. Aday biyobelirteçler ile bağışıklık hücresi fraksiyonları arasındaki korelasyonlar, Spearman sıra korelasyonu kullanılarak değerlendirilmiştir.
Deneysel veriler ortalama ± SD olarak sunulmuştur. Üç bağımsız hayvan grubu arasındaki karşılaştırmalar, parametrik analiz varsayımları karşılandığında tek yönlü varyans analizi kullanılarak gerçekleştirilmiştir. Post hoc karşılaştırmalar için, varyanslar homojen olduğunda en düşük anlamlı fark testi, varyanslar eşit olmadığında ise Dunnett's T3 testi kullanılmıştır. Bazal ve 8. hafta farmakodinamik ölçümleri ayrı analiz edilmiş ve sunulmuştur; grup-zaman etkileşimine ilişkin herhangi bir çıkarım yapılmamıştır. Biyoenformatik ve makine öğrenimi analizleri için kullanılan R betikleri ve kaynak veriler Ek Dosya 1'de sunulmuştur.
Sonuçlar
DN tedavisinde LLF için potansiyel mitokondri ile ilişkili aday biyobelirteçleri sistematik olarak araştırmak amacıyla dört aşamalı bir analitik iş akışı tasarladık (Şekil 1). I. Aşama'da, GSE142025 veri setinden (eğitim seti, tüm böbrek, n=36) ve GSE96804 veri setinden (doğrulama seti, glomerulus, n = 61) alınan transkriptomik verileri, MitoCarta 3.0 veri tabanındaki 1.136 mitokondri ile ilişkili gen ve TCMSP veri tabanındaki 9 aktif bileşenin 517 öngörülen hedefi ile entegre ettik. Bu üç gen setinin kesişimi sonucunda 9 aday gen elde edildi. II. Aşama'da, RMSE < 0,281 eşik değeri kullanılarak özellik genlerini önceliklendirmek için dört makine öğrenimi modeli (RF, KNN, PLS ve SVM) uygulandı. ROC analizi (her iki veri setinde AUC > 0,7) kullanılarak yapılan veri setleri arası doğrulama ile dört aday biyobelirteç belirlendi: CAT, FABP1, MAOB ve MAOA. III. Aşama'da, zenginleşmiş KEGG yolaklarını belirlemek için GSEA, CIBERSORT kullanarak immün infiltrasyon analizi ve m6A modifikasyon öngörüsü gerçekleştirdik; ardından lncRNA-miRNA-mRNA, aktif bileşen-biyobelirteç ve aktif bileşen-biyobelirteç-yolak ağları oluşturup moleküler kenetleme yaptık. IV. Aşama'da, LLF'nin farmakodinamik etkileri ve dört aday biyobelirtecin mRNA ekspresyonundaki değişiklikler, DN'nin bir db/db fare modelinde değerlendirildi.
DN tedavisi için LLF aday genlerinin taranması
GSE142025 veri setinde, DN ve kontrol grupları arasında 1.904'ü artmış ve 1.906'sı azalmış olmak üzere toplam 3.810 DEG belirlenmiştir (Şekil 2A,B). TCMSP veri tabanı kullanılarak LLF'den on üç aktif bileşen öngörülmüştür; bunlar beta-sitosterol, kaempferol, taxifolin, Lucidumoside D, Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, eriodictyol, syringaresinol diglucoside_qt, Lucidusculine, Olitoriside, Olitoriside_qt, luteolin ve quercetin'dir (Tablo 2). Dört aktif bileşen—Lucidumoside D_qt, (20S)-24-ene-3,20-diol-3-acetate, syringaresinol diglucoside_qt ve Olitoriside_qt—herhangi bir potansiyel hedef gen öngörmemiş, geri kalan dokuz bileşen ise 517 potansiyel hedef gen öngörmüştür. 3.810 DEG, 1.136 MRG ve 517 potansiyel hedef genin çakıştırılmasıyla dokuz aday gen belirlenmiştir: GPX1, BAX, CASP8, MAOA, MAOB, CAT, AKR1B10, ALDH2 ve FABP1 (Şekil 2C). Ardından bir aktif bileşen-aday gen ağı oluşturulmuştur (Şekil 2D). Bu dokuz aday gen; toksik maddelere yanıt, organik hidroksi bileşik katabolik süreci ve hücresel detoksifikasyon dahil olmak üzere 341 GO teriminde zenginleşmiştir (Şekil 2E). Ayrıca, triptofan metabolizması, nörodejeneratif yolaklar ve histidin metabolizması gibi 52 KEGG yolağı ile ilişkilendirilmişlerdir (Şekil 2F).
LLF'de DN tedavisi için aday biyobelirteçlerin taranması
PPI ağı, MAOA, ALDH2, MAOB ve AKR1B10'in etkileşime girdiği yedi düğüm ve sekiz kenar ortaya çıkarmıştır (Şekil 3A). Dört makine öğrenimi modeli genelinde RMSE değerleri 0,281'den küçük olan genler, özellik genleri olarak tanımlanmıştır: CAT, MAOB, MAOA, BAX ve FABP1 (Şekil 3B-E). Ekspresyon analizi, CAT, FABP1, MAOB ve MAOA'nın DN ve kontrol grupları arasında anlamlı derecede farklı olduğunu ve hem GSE142025 hem de GSE96804 veri setlerinde tutarlı olduğunu göstermiştir (Şekil 3F,G). Ayrıca, ROC eğrisi analizindeki AUC değerleri her iki veri setinde de 0,7'yi aşmış olup, bu durum söz konusu genlerin DN örneklerini kontrol örneklerinden etkili bir şekilde ayırt edebileceğini ve LLF'de DN tedavisi için aday biyobelirteçler olarak hizmet edebileceğini göstermektedir (Şekil 4A-H).
İnflamatuvar ve immün ilişkili yolaklarda aday biyobelirteçlerin anlamlı zenginleşmesi
GSEA, kemokin sinyal yolu ve sitokin-sitokin reseptör etkileşimlerinde belirgin şekilde zenginleşmiş dört aday biyobelirteç tanımlamıştır (Şekil 5A-D). Bunlar arasında peroksidaz sinyal yolu; CAT, MAOA ve MAOB ile anlamlı bir ilişki göstermiştir.
Aday biyobelirteçlerin bağışıklık hücreleri ile korelasyonu
DN ve kontrol örnekleri arasında dokuz bağışıklık hücresi tipinin—naif B hücreleri, M0 Makrofaj, M1 Makrofaj, M2 Makrofaj, aktive mast hücresi, aktive NK hücresi, dinlenme halindeki hafıza CD4+ T hücresi, naif CD4+ T hücresi ve CD8+ T hücresi—ekspresyonunda belirgin farklılıklar gözlemlenmiştir (P < 0.05) (Şekil 6A,B). Naif B hücreleri ile aktive NK hücreleri arasında anlamlı pozitif bir korelasyon (cor = 0.6) bulunurken, naif B hücreleri ile aktive mast hücreleri arasında anlamlı negatif bir korelasyon (cor = -0.69) saptanmıştır (Şekil 6C). Tüm aday biyobelirteçler, CD8+ T hücreleri ve aktive mast hücreleri ile güçlü negatif korelasyonlar; aktive NK hücreleri ve naif B hücreleri ile ise pozitif korelasyonlar sergilemiştir (Şekil 6D).
Temel modifiye m6A proteinlerinin aday biyobelirteçlerle etkileşimi
The m6Bir RNA metilasyon modifikasyonu, RNA sentezini ve metabolizmasını derinlemesine etkiler ve çeşitli hastalıkların patogenezinde rol oynar29. m'nin konumları6Aday biyobelirteçlerdeki modifikasyon bölgeleri ve bunların ikincil yapılardaki yüksek güvenilirlikli konumları şurada gösterilmiştir Şekil 7A-HYapılan daha detaylı analizler, temel m6A-modifiye proteinlerin etkileşime girdiği Katalaz AQR ve RBM2'yi içerirken, FABP1 hem SF3A3 hem de AQR ile etkileşime girmiştir. MAOA IGF2BP3 ve IGF2BP2 ile etkileşime girdiği saptanmış olup, MAOB TIA1 ile (Tablo 3).
DN tedavisinde LLF için taksifolin, beta-sitosterol ve eriodiktiyolün uygun in silico bağlanma öngörüleri
miRNet'te, CAT'nin 24 miRNA ile etkileşime gireceği öngörülürken, FABP1 beş miRNA ile ilişkilendirilmiştir. Ayrıca, MAOB ve MAOA sırasıyla 29 ve 26 miRNA ile bağlantılı bulunmuştur. Bunlar arasında, hem TarBase hem de Starbase veri tabanlarında 23 lncRNA tanımlanmıştır. Daha sonra, dört aday biyobelirteç, 74 miRNA ve 23 lncRNA'yı içeren bir lncRNA-miRNA-mRNA düzenleyici ağı oluşturulmuştur (Şekil 8A). Aday biyobelirteçleri hedefleyen potansiyel aktif bileşenler arasında luteolin, beta-sitosterol, eriodiktiyol, kaempferol, kuersetin ve taksifolin yer almıştır (Şekil 8B). Ayrıca; aktif bileşenler, aday biyobelirteçler ve GSEA'da tanımlanan ilk beş yolak temel alınarak bir aktif bileşen-biyobelirteç-yolak ağı kurulmuştur (Şekil 8C). Örneğin, taksifolin peroksizom yolağındaki CAT'yi hedeflemiştir. CAT ile taksifolin (-8.8 kcal/mol), FABP1 ile beta-sitosterol (-8.1 kcal/mol) ve MAOB ile eriodiktiyol (-9.8 kcal/mol) arasındaki bağlanma enerjilerinin tamamı -5 kcal/mol'in altında çıkmış olup, bu durum söz konusu aday biyobelirteçler ile ilgili aktif bileşenleri arasında güçlü afiniteler olduğunu göstermektedir27. Taksifolin, beta-sitosterol ve eriodiktiyol, DN tedavisinde LLF içerisinde uygun in silico bağlanma öngörüleri olan potansiyel aktif bileşenler olarak tanımlanmıştır (Şekil 8D-F). Ancak bunlar, gözlemlenen in vivo etkilerin doğrulanmış biyoaktif ara ürünleri değil, veri tabanı tarafından öngörülen bileşenler olarak sunulmuştur.
DN fare modelindeki aday biyobelirteçleri doğrulayın
DN farelerinin tedavisinde LLF'nin farmakodinamik değerlendirmesi
Uygulama süresi boyunca, farelerde kan glukozu ve idrar mikroalbumin seviyeleri izlenmiştir (Şekil 9A-D). Kontrol grubuyla karşılaştırıldığında, DN model grubunda kan glukozu ve idrar mikroalbumin seviyeleri anlamlı düzeyde artmıştır (P < 0.01); DN model grubuyla karşılaştırıldığında, tedavi grubundaki farelerin kan glukozu 4 haftalık uygulamadan sonra anlamlı derecede azalmış (P < 0.01) ve tedavi grubundaki farelerin idrar mikroalbumin seviyeleri 8 haftalık uygulamadan sonra anlamlı derecede azalmıştır (P < 0.05). Sonuçlar, LLF'nin DN tedavisinde faydalı olabileceğini göstermektedir.
DN farelerinin tedavisinde LLF'nin patolojik değerlendirmesi
HE boyamasının ardından, kontrol grubunun böbrek dokusunda belirgin glomerüler yapılar görülmüştür. Buna karşılık, DN model grubunda, normal grupla karşılaştırıldığında glomerüler nükleer piknoz ve hiperkromazinin yanı sıra glomerüller çevresinde inflamatuar hücre infiltrasyonu gözlenmiştir. LLF tedavisi, db/db farelerinin böbreklerindeki patolojik hasarı iyileştirmiştir (Şekil 9E).
DN farelerinde aday biyobelirteçlerin ekspresyonunun RT-PCR analizi
DN fare modelinin başarıyla oluşturulması ve LLF tedavisiyle semptomlarda belirgin iyileşme gözlemlenmesinin ardından, aday biyobelirteçlerdeki değişiklikleri analiz etmek için RT-qPCR kullanılmıştır. Kontrol grubuyla karşılaştırıldığında, DN grubunda CAT ve MAOA ekspresyonu önemli ölçüde azalmıştır (P < 0.05 veya P < 0.01). Buna karşılık, tedavi grubu DN grubuna göre anlamlı derecede daha yüksek CAT ve MAOA ekspresyonu göstermiştir (P < 0.05). Ancak, gruplar arasında MAOB ve FABP1 ekspresyonunda istatistiksel olarak anlamlı bir fark gözlemlenmemiştir (Şekil 9F-I).
Veri kullanılabilirliği
Bu çalışmada analiz edilen gen ekspresyon veri setlerine, Gene Expression Omnibus (GEO) üzerinden GSE142025 ve GSE96804 erişim numaralarıyla kamuya açık olarak ulaşılabilir. Biyoenformatik analizler için kullanılan R scriptleri, deneysel kaynak verilerle (kan glukozu, üriner mikroalbümin ve RT-qPCR verileri) birlikte Ek Dosya 1'de sunulmuştur. Bu çalışmada kullanılan diğer tüm veri tabanları, yazılımlar ve web kaynakları Materyal Tablosu'nda listelenmiştir.
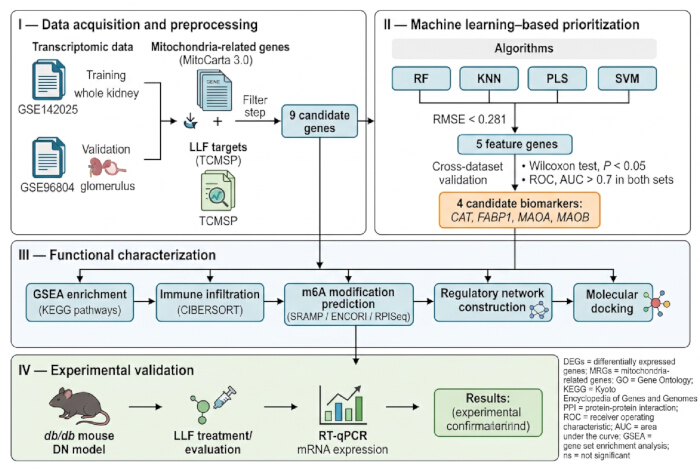
Şekil 1: Çalışmanın iş akışı. Aday genleri belirlemek için transkriptomik veri setleri, mitokondri ile ilişkili genler ve Ligustri Lucidi Fructus'un öngörülen hedefleri entegre edilmiştir. Ardından, özellik genlerini önceliklendirmek için dört makine öğrenimi algoritması kullanılmış, bunu veri seti arası doğrulama, fonksiyonel karakterizasyon ve db/db farelerde deneysel doğrulama izlemiştir. Kısaltmalar: DN = diyabetik nefropati; DEGs = diferansiyel olarak ifade edilen genler; MRGs = mitokondri ile ilişkili genler; LLF = Ligustri Lucidi Fructus; RF = random forest; KNN = k-en yakın komşu; PLS = kısmi en küçük kareler; SVM = destek vektör makinesi; RMSE = kare ortalama karekök hata; GSEA = gen seti zenginleştirme analizi; RT-qPCR = ters transkripsiyon kantitatif polimeraz zincir reaksiyonu. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
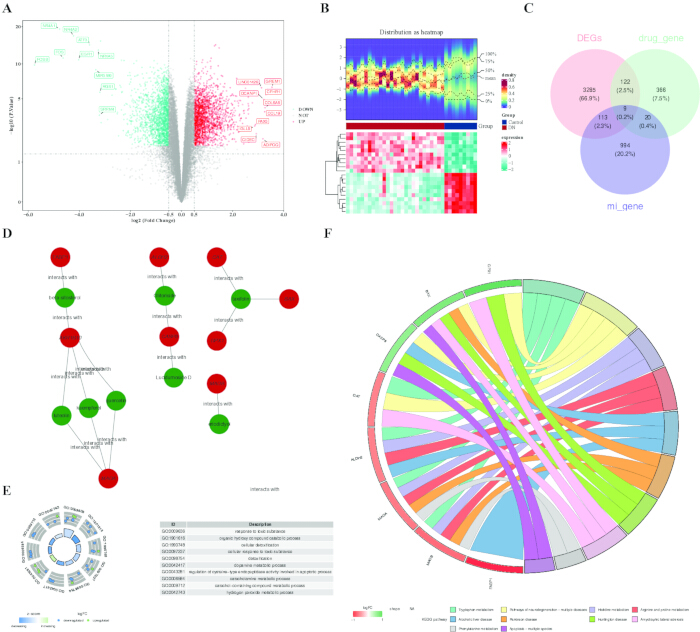
Şekil 2: DN'nin LLF tedavisi için aday genlerin taranması ve fonksiyonel karakterizasyonu. (A) GSE142025'teki DN ve kontrol örnekleri arasında farklı şekilde eksprese edilen genleri gösteren yanardağ grafiği. (B) |log2FC| değerine göre sıralanmış, en yüksek eksprese olan (upregulated) ilk 10 ve en düşük eksprese olan (downregulated) ilk 10 genin ısı haritası. (C) DEG'lerin, MRG'lerin ve öngörülen LLF hedef genlerinin kesişimini gösteren Venn diyagramı. (D) Aktif bileşen–aday gen ağı. (E) Aday genlerin Gen Ontolojisi zenginleştirme analizi. Çubuk yüksekliği zenginleştirme anlamlılığını temsil eder ve z-skoru fonksiyonel regülasyonun öngörülen yönünü belirtir. (F) Aday genlerin Kyoto Gen ve Genom Ansiklopedisi yolak zenginleştirme analizi. Kısaltmalar: DN = diyabetik nefropati; LLF = Ligustri Lucidi Fructus; DEGs = farklı şekilde eksprese edilen genler; MRGs = mitokondri ile ilişkili genler; GO = Gen Ontolojisi; KEGG = Kyoto Gen ve Genom Ansiklopedisi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
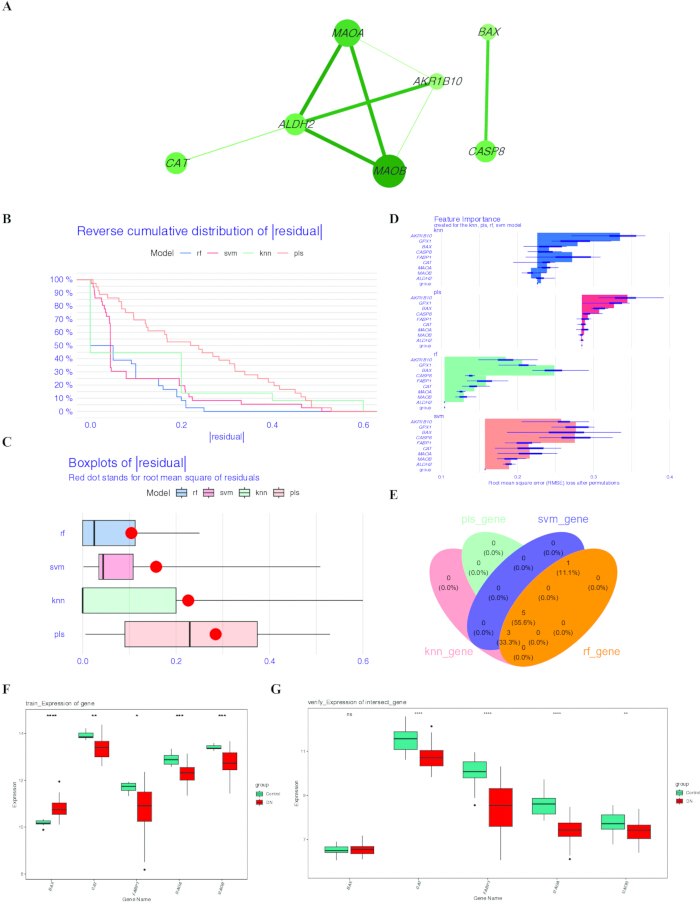
Şekil 3: Makine öğrenimine dayalı aday biyobelirteçlerin tanımlanması. (A) Aday genler tarafından kodlanan proteinlerin protein-protein etkileşim ağı. (B) RF, KNN, PLS ve SVM modelleri için artıkların ters kümülatif dağılımı. (C) Dört modelin artık dağılımlarını gösteren kutu grafikleri; kırmızı nokta ortalama karekök hatasını belirtir. (D) Dört makine öğrenimi modeli genelinde aday genlerin RMSE tabanlı önemi. (E) Dört modelin tamamında RMSE < 0.281 kriterini karşılayan özellik genlerinin kesişimi. (F,G) Sırasıyla GSE142025 ve GSE96804'teki seçili özellik genlerinin ekspresyonu. Kısaltmalar: RF = rastgele orman; KNN = k-en yakın komşu; PLS = kısmi en küçük kareler; SVM = destek vektör makinesi; RMSE = ortalama karekök hata. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
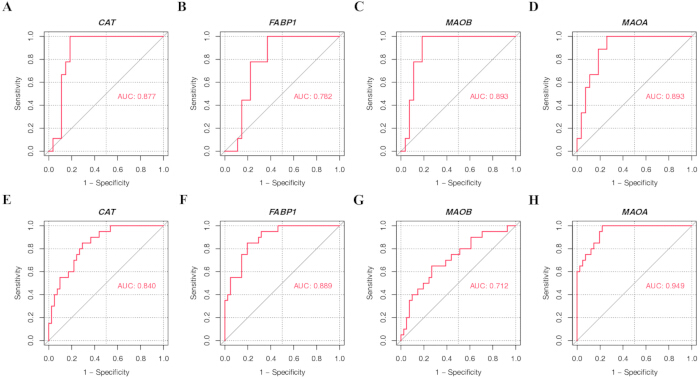
Şekil 4: Dört aday biyobelirtecin alıcı işletim karakteristik eğrileri. (A-D) GSE142025 eğitim veri seti ve (E-H) GSE96804 doğrulama veri setindeki CAT, FABP1, MAOB ve MAOA için ROC eğrileri. AUC, alıcı işletim karakteristik eğrisinin altında kalan alanı temsil eder. Kısaltmalar: ROC = alıcı işletim karakteristiği; AUC = eğri altında kalan alan. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
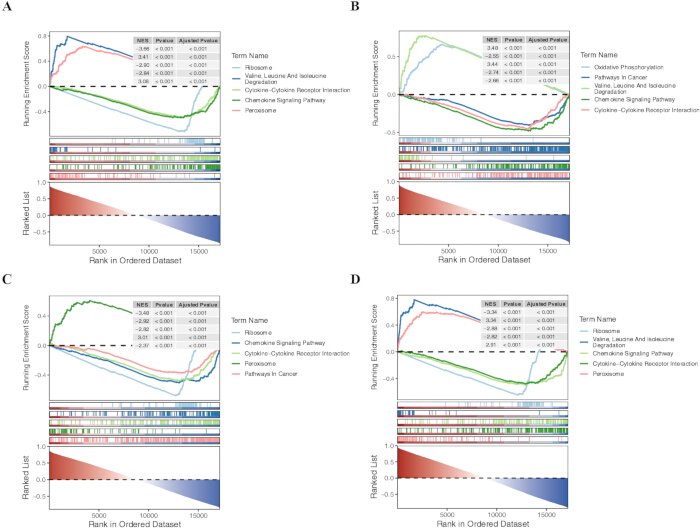
Şekil 5: Aday biyobelirteçlerin gen seti zenginleştirme analizi. GSE142025 veri setinde (A) CAT, (B) FABP1, (C) MAOA ve (D) MAOB ile ilişkili, anlamlı derecede zenginleşmiş KEGG yolaklarını gösteren GSEA. Kısaltmalar: GSEA = gen seti zenginleştirme analizi; KEGG = Kyoto Gen ve Genom Ansiklopedisi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
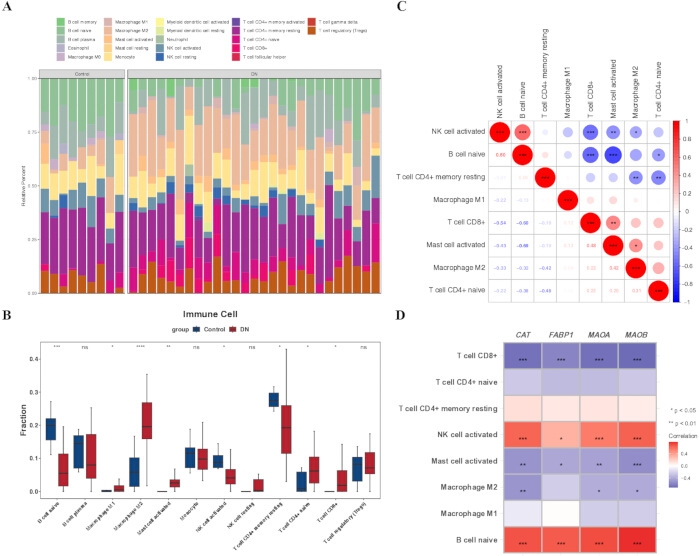
Şekil 6: DN'de immün hücre infiltrasyonu ve bunun aday biyobelirteçlerle ilişkisi. (A) DN ve kontrol örneklerinde CIBERSORT ile tahmin edilen 22 immün hücre tipinin göreceli oranları. (B) DN ve kontrol grupları arasında anlamlı derecede farklı olan immün hücre fraksiyonlarının karşılaştırılması. (C) Diferansiyel bolluğa sahip immün hücre tipleri arasındaki korelasyon matrisi. (D) CAT, FABP1, MAOA ve MAOB ekspresyonları ile diferansiyel bolluğa sahip immün hücre tipleri arasındaki Spearman korelasyonları. Kısaltmalar: DN = diyabetik nefropati. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
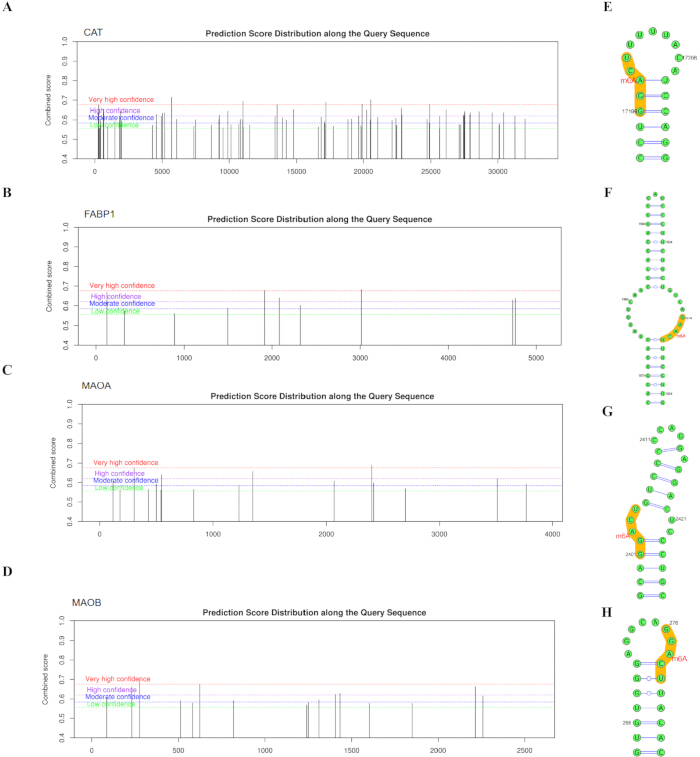
Şekil 7: Aday biyobelirteç transkriptlerinin öngörülen m6A modifikasyon bölgeleri ve RNA ikincil yapıları. (A) CAT, (B) FABP1, (C) MAOA ve (D) MAOB'deki öngörülen m6A modifikasyon bölgeleri. (E) CAT, (F) FABP1, (G) MAOA ve (H) MAOB'nin yüksek güvenilirlikli m6A ile ilişkili bölgelerini gösteren öngörülen RNA ikincil yapıları. Sarı ile vurgulanan bölgeler, m6A modifikasyon bölgelerini içeren öngörülen sekans bölgelerini göstermektedir. Kısaltma: m6A = N6-metiladenozin. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
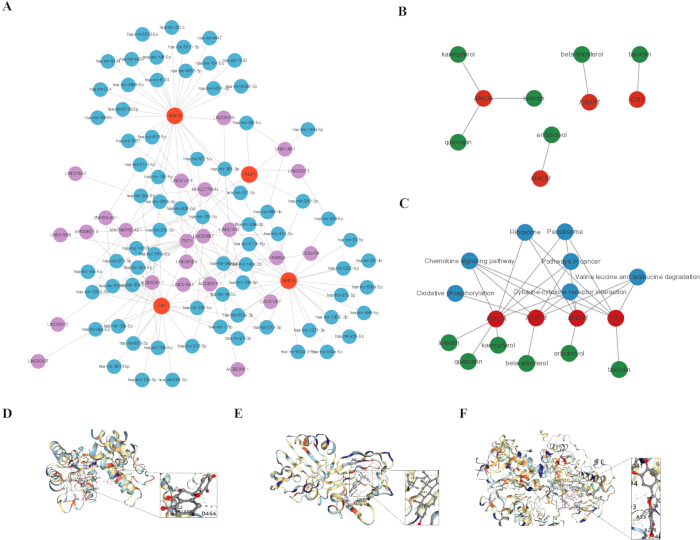
Şekil 8: LLF'nin potansiyel aktif bileşenlerinin düzenleyici ağları ve moleküler kenetlenmeleri. (A) Aday biyobelirteçleri içeren öngörülen lncRNA–miRNA–mRNA düzenleyici ağı. (B) Potansiyel LLF aktif bileşenleri ve aday biyobelirteçlerin ağı. (C) GSEA sonuçlarına dayalı aktif bileşen–biyobelirteç–yolak ağı. (D-F) (D) taksifolin ile CAT, (E) beta-sitosterol ile FABP1 ve (F) eriodiktiyol ile MAOB'nin öngörülen moleküler kenetlenme konformasyonları. Kısaltmalar: LLF = Ligustri Lucidi Fructus; lncRNA = uzun kodlamayan RNA; miRNA = mikroRNA; GSEA = gen seti zenginleştirme analizi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
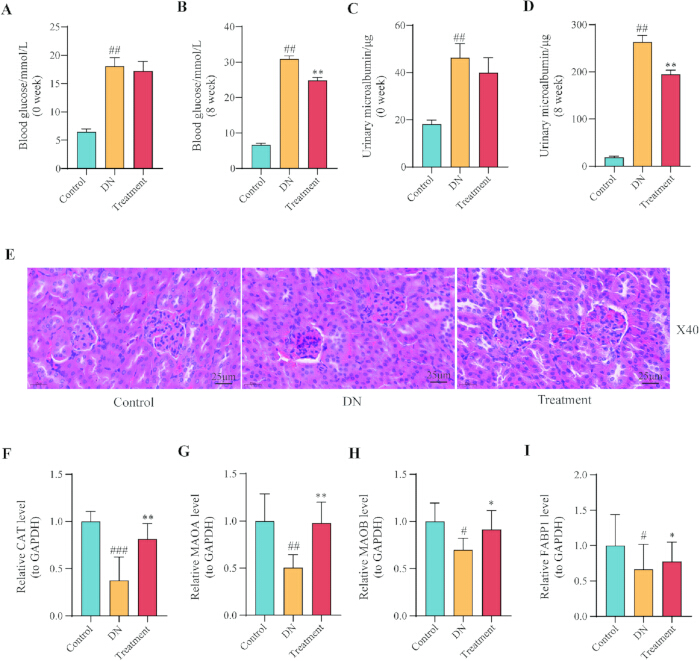
Şekil 9: db/db farelerde LLF tedavisinin biyokimyasal göstergeler, renal histopatoloji ve aday biyobelirteç ekspresyonu üzerindeki etkileri. (A,B) Sırasıyla başlangıçtaki ve 8. haftadaki kan glukoz seviyeleri. (C,D) Sırasıyla başlangıçtaki ve 8. haftadaki idrar mikroalbümin seviyeleri. (E) Kontrol, DN ve Tedavi gruplarından temsilci hematoksilin ve eosin boyalı böbrek kesitleri (büyütme, ×40; ölçek çubuğu = 25 µm). (F-I) RT-qPCR ile ölçülen sırasıyla Cat, Maoa, Maob ve Fabp1'in bağıl renal mRNA ekspresyon seviyeleri. Kontrol grubuna kıyasla #P < 0.05, ##P < 0.01 ve ###P < 0.01; DN grubuna kıyasla *P < 0.05, **P < 0.01 ve ***P < 0.01. Kısaltmalar: LLF = Ligustri Lucidi Fructus; DN = diyabetik nefropati; RT-qPCR = ters transkripsiyon kantitatif polimeraz zincir reaksiyonu. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| primer | diziler |
| Katalaz F | TCACTGACGAGATGGCACAC |
| KAT R | ATCGAACGGCAATAGGGGTC |
| FABP1 F | CAATAGGTCTGCCCGAGGAC |
| FABP1 R | GTCATGGTCTCCAGTTCGCA |
| MAOB F | GCACTGAAACAGCCTCACAC |
| MAOB R | TCGTGCAGGGACATCCAAAG |
| MAOA F | ACTTACCCATTCCGTGGTGC |
| MAOA R | ACCACAGGGCAGATACCTCA |
| M-GAPDH F | CCTTCCGTGTTCCTACCCC |
| M-GAPDH R | GCCCAAGATGCCCTTCAGT |
Tablo 1: Fare böbrek dokularının RT-qPCR analizi için kullanılan primer dizileri. Kısaltmalar: F = ileri primer; R = geri primer; RT-qPCR = ters transkripsiyon kantitatif polimeraz zincir reaksiyonu.
| Molekül Kimliği | Molekül adı | OB (%) | DL | Hedef sayı |
| MOL00358 | beta-sitosterol | 36.91 | 0.75 | 100 |
| MOL0042 | kaempferol | 41.88 | 0.24 | 103 |
| MOL04576 | taksifolin | 57.84 | 0.27 | 92 |
| MOL05146 | Lucidumoside D | 48.87 | 0.71 | 104 |
| MOL05147 | Lucidumoside D_qt | 54.41 | 0.47 | 0 |
| MOL05169 | (20S)-24-en-3,20-diol-3-asetat | 40.23 | 0.82 | 0 |
| MOL05190 | eriodictyol | 71.79 | 0.24 | 101 |
| MOL05195 | syringaresinol diglukozid_qt | 83.12 | 0.8 | 0 |
| MOL05209 | Lucidusculine | 30.11 | 0.75 | 105 |
| MOL0521 | Olitoriside | 65.45 | 0.23 | 100 |
| MOL05212 | Olitorisid_qt | 103.23 | 0.78 | 0 |
| MOL06 | luteolin | 36.16 | 0.25 | 102 |
| MOL0098 | kuersetin | 46.43 | 0.28 | 103 |
Tablo 2: TCMSP veri tabanı kullanılarak tanımlanan Ligustri Lucidi Fructus'nun on üç aktif bileşeni. Kısaltmalar: OB = oral biyoyararlanım; DL = ilaç benzerliği.
| mRNA | Protein | RF | SVM |
| CAT | AQR | 0.7 | 0.98 |
| CAT | RBM2 | 0.8 | 0.97 |
| FABP1 | AQR | 0.65 | 0.94 |
| FABP1 | SF3A3 | 0.7 | 0.8 |
| MAOA | IGF2BP2 | 0.75 | 0.97 |
| MAOA | IGF2BP3 | 0.75 | 0.97 |
| MAOB | TIA1 | 0.85 | 0.89 |
Tablo 3: Dört mitokondriyal biyobelirteç mRNA'sı ile m6A ile ilişkili RNA-bağlayıcı proteinler arasındaki öngörülen etkileşimler. CAT, FABP1, MAOA ve MAOB insan biyobelirteç mRNA'larını; AQR, RBM2, SF3A3, IGF2BP2, IGF2BP3 ve TIA1 ise RNA-bağlayıcı proteinleri ifade eder. RF ve SVM skorları > 0,5 tahmin edilen RNA–protein etkileşimlerini belirtir. Kısaltmalar: RF = rastgele orman; SVM = destek vektör makinesi.
Ek Dosya 1. Biyoenformatik betikleri ve deneysel kaynak veriler. Bu arşiv; veri işleme, diferansiyel ekspresyon analizi, fonksiyonel zenginleştirme, makine öğrenimi, alıcı işletim karakteristiği (ROC) analizi, gen seti zenginleştirme analizi, Spearman korelasyon analizi ve CIBERSORT immün hücre infiltrasyon analizi için kullanılan R betiklerinin yanı sıra kan glukozu, idrar mikroalbumin ve RT-qPCR deneylerine ait kaynak verileri içermektedir. Bu dosyayı indirmek için lütfen buraya tıklayınız.
Tartışma
LLF, öncelikle karaciğer ve böbrekleri beslemek, diyabeti ve komplikasyonlarını tedavi etmek için kullanılan yaygın bir geleneksel Çin ilacıdır. Günümüzde DN için spesifik ilaçlar veya tedaviler bulunmamakta olup, yönetimi temel olarak hipoglisemik, hipolipidemik ve antihipertansif tedavilere dayanmaktadır30,31,32. Ancak bu tedaviler, renal hasar ilerlemesini yalnızca küçük bir hasta grubunda yavaşlatabilmektedir3. LLF'nin, glikoz ve lipid metabolizması bozukluklarını düzelterek ve oksidatif stresi azaltarak DN sıçan modellerinde renal koruyucu etkiler gösterdiği kanıtlanmıştır34. Özellikle, olağanüstü yüksek mitokondriyal içeriğe ve oksijen tüketimine sahip bir organ olması nedeniyle, böbrekteki anormal mitokondriyal dinamikler DN patogenezinde merkezi bir rol oynamaktadır35. Bu çalışma, LLF'nin DN tedavisinde spesifik aday biyobelirteçler (CAT, FABP1, MAOB ve MAOA) aracılığıyla mitokondriyal fonksiyonu etkileyebileceği yeni bir mekanizmayı ortaya koymaktadır.
Önceki çalışmalar katalaz (CAT), yağ asidi bağlayıcı protein 1 (FABP1), monoamin oksidaz B (MAOB) ve monoamin oksidaz A (MAOA)'nın farklı derecelerde DN ile ilişkili olduğunu göstermiştir. CAT , böbreği oksidatif stres kaynaklı hasarlardan koruyarak antioksidan savunma sisteminde görev alır36. Vücuttaki temel bir antioksidan enzim olan CAT, mitokondri ile ilişkili fizyolojik süreçleri modüle ederek DN oluşumunun ve ilerlemesinin düzenlenmesinde rol oynar37. CAT, özellikle hidrojen peroksitin (H₂O₂) su ve oksijene ayrışmasını katalize ederek mitokondrilerden kaynaklanan ROS'ları etkili bir şekilde temizler. Bu durum, oksidatif stres kaynaklı mitokondriyal yapı ve fonksiyon hasarını azaltır, mitokondriyal membran potansiyeli stabilitesini ve oksidatif fosforilasyon verimliliğini korur, böylece yüksek glikoz kaynaklı renal hücre hasarını hafifletir ve DN ilerlemesini geciktirir38. Ayrıca, CAT ekspresyonunun azalması, yetersiz mitokondriyal ROS temizliğine yol açarak mitokondriyal fragmantasyonu ve kristae bozulmasını şiddetlendirir. Bu durum, fissiyonu teşvik ederken mitokondriyal füzyonu inhibe ederek mitokondriyal dinamikleri daha da istikrarsızlaştırır. Sonuç olarak, mezangiyal hücreler ve podositler gibi intrinsik hücrelerde metabolik bozukluklar gelişir ve bu da renal doku fibrozisini hızlandırır39.
FABP1, yağ asidi bağlayan protein ailesinin bir üyesi olarak, öncelikle uzun zincirli yağ asitlerinin taşınmasında, metabolizmasında ve hücre içi sinyal iletiminde rol oynar. Anormal ekspresyonunun çeşitli metabolik hastalıklar ve böbrek hasarı ile yakından ilişkili olduğu ve diyabetik nefropatinin (DN) gelişiminde ve ilerlemesinde kritik bir düzenleyici rol oynadığı kanıtlanmıştır40. Araştırmalar, FABP1'in lipid metabolizmasını bozarak DN ilerlemesini modüle ettiğini göstermektedir. Diyabette, anormal FABP1 ekspresyonu yağ asidi taşınımını ve metabolizmasını bozar. Serbest yağ asitlerinin ve metabolitlerinin böbrek dokusunda aşırı birikimi, glomerüler endotel ve tübüler epitel hücrelerine doğrudan zarar vererek böbrek inflamasyonunu ve fibrozisini şiddetlendirir41. Eş zamanlı olarak FABP1, oksidatif stres ve hipoksi kaynaklı hasarı aracılık ederek böbrek dokusu yaralanmasını artır. İdrarla atılımının, idrar albümin seviyeleri anormalleşmeden önce artabileceği, bu durumun erken DN taraması ve tanısı için yeni bir hedef sunduğu belirtilmiştir41,42. Dahası, FABP1 mitokondriyal yağ asidi metabolizmasında merkezi bir düzenleyici rol oynar43. Çalışmalar, FABP1'in yukarı regülasyonunun mitokondriye yağ asidi taşıma verimliliğini önemli ölçüde artırdığını, mitokondriyal β-oksidasyon aktivitesini ve trikarboksilik asit döngüsü enzim aktivitesini yükselttiğini, böylece hücresel enerji metabolizmasını iyileştirdiğini göstermektedir4. Ancak, FABP1'in mitokondri ile ilişkili süreçlerdeki rolü aracılığıyla DN patogenezini etkileme mekanizması henüz net değildir. DN ile ilişkili diğer durumlarda, nörotransmitter metabolizmasında yer alan enzimler olan MAOB ve MAOA, doku redoks durumunda dengesizliğe katkıda bulunarak DN ilerlemesi ile ilişkilendirilmiştir. Bu çalışma, DN'de bu dört aday biyobelirtecin kritik rolünü daha da doğrulamakta olup, ekspresyon seviyelerinin DN grubunda azaldığı görülmüştür. Bu aday biyobelirteçlerin ekspresyonunun modüle edilmesinin, DN'deki inflamasyonu ve oksidatif stresi azaltmaya yardımcı olabileceği hipotezi kurulmuştur.
GSEA zenginleştirme analizine dayanarak, dört aday biyobelirteç olan CAT, FABP1, MAOB ve MAOA'nın; kemokin sinyal yolu, sitokin-sitokin reseptörü etkileşimi ve peroksizom yolları dahil olmak üzere birden fazla yolakta zenginleştiği belirlenmiştir. Kemokinler, inflamasyonu teşvik eden immün yanıtın temel bileşenleridir. Peroksidaz (POD) yolağı ise oksidatif stres ile ilişkilidir45. Baikalinin, oksidatif stresi ve inflamasyonu azaltarak DN'yi hafiflettiği; mekanizmasının ise potansiyel olarak NrF2 aracılı antioksidan sinyal yolağının aktivasyonunu ve MAPK aracılı inflamatuar yolağın inhibisyonunu içerdiği bildirilmiştir45. Ayrıca, lipid metabolizmasında FABP1 disregülasyonu, DN'deki glomerüler skleroz ve interstisyel fibrozise katkıda bulunabilir9. Bu bulgular, aday biyobelirteçlerin DN'deki inflamatuar ve oksidatif stres süreçlerinde kritik bir rol oynadığını göstermektedir. Bu aday biyobelirteçlerin, etkiledikleri yolakları modüle etmek amacıyla hedeflenmesi, DN ile ilişkili inflamasyonu ve oksidatif stresi azaltabilir, böylece hastalığın ilerlemesini hafifletebilir.
Biyoinformatik analizler, DN böbrek dokusundaki CD8+ T hücreleri gibi bağışıklık alt kümelerinin infiltrasyon seviyelerinin önemli ölçüde değiştiğini ve CD8+ T hücrelerindeki artışın dört mitokondriyal ilişkili aday biyobelirteçle (CAT, FABP1, MAOB, MAOA) anlamlı ve negatif korelasyon gösterdiğini ortaya koymuştur. Bu hesaplamalı öngörüler, hayvan deneylerinin patolojik gözlem sonuçlarıyla uyumludur: DN model grubundaki farelerin böbreklerinin HE boyama kesitleri, glomerüllerin çevresinde belirgin inflamatuar hücre infiltrasyonu göstermiştir; LLF müdahalesinden sonra, tedavi grubundaki renal inflamatuar hücre infiltrasyonu anlamlı derecede azalmış ve patolojik hasar iyileşmiştir. Bu durum, artan inflamatuar hücre infiltrasyonunun DN renal hasarının temel bir özelliği olduğunu ve LLF'nin immün infiltrasyonu düzenleyerek koruyucu bir rol oynayabileceğini düşündürmektedir. Bu bulgu önceki çalışmalarla uyumludur: CD8+ T hücrelerinin infiltrasyonu DN'nin gelişimi ile ilişkilidir ve yanıtlarının inhibisyonu hastalığı hafifletebilir46, aynı zamanda Adriamycin nefropatisinde renal hasarı şiddetlendirir47. Ek olarak, B hücreleri, M1 / M2 makrofajlar ve NK hücreleri gibi çeşitli immün hücreler DN patolojisinde değişiklik gösterir48. CAT biyobelirteci DN'deki immün hücrelerin fonksiyonunu etkileyebilir49 ve MAOA da makrofaj polarizasyonunu düzenleyerek immün mikroçevreyi etkileyebilir. Bu sonuçlar, LLF'nin renal koruyucu etkisinin, CD8+ T hücreleri dahil olmak üzere anormal immün infiltrasyonu düzenlemesiyle yakından ilişkili olduğunu ve böylece inflamatuar hasarı azalttığını göstermektedir. Dört aday biyobelirteç ile CD8+ T hücreleri ve aktive olmuş mast hücreleri arasındaki negatif korelasyonlar, bu genlerin renal immün mikroçevreyi modüle edebileceğini düşündürmektedir. CAT ekspresyonu, metabolik dokulardaki makrofaj polarizasyonu ve T hücresi aktivitesi ile ilişkilendirilmiştir. Ancak, CIBERSORT tahminlerimiz, glomerüler bölgeye karşı tubulointerstisyel bölgeye infiltre olan immün hücre alt tiplerini ayırt edemeyen bulk renal doku transkriptomlarından türetilmiştir. Gözlemlenen korelasyonlar, nedensel immün düzenleme kanıtlarından ziyade hipotez oluşturucu ilişkiler olarak yorumlanmalıdır. Bu immün-biyobelirteç etkileşimlerini lokalize etmek için multipleks immünohistokimya veya tek hücreli RNA-seq kullanan gelecek çalışmalara ihtiyaç vardır.
Önceki çalışmalar, DN'de OPA1, MFN2, DRP1, PGC-1α ve SOD2 dahil olmak üzere mitokondri ile ilişkili biyobelirteçler bildirmiştir. CAT ve MAOA bulgularımız, DN mitokondriyal bağlamında daha az dikkat çekmiş olan peroksizomal ve monoamin oksidaz yolaklarını vurgulayarak mevcut literatürü tamamlamaktadır. Özellikle, SOD2 ve GPX1 klasik ROS temizleyici enzimler iken, CAT spesifik olarak peroksizomal H2O2'yi hedefleyerek oksidatif stres regülasyonunun farklı bir hücresel alt bölmesini işaret etmektedir.
Doğal bir flavonoid olan Taksifolin'in (TA), diyabetik sıçanlarda kan glukozu, ürik asit, kreatinin ve serum insülin seviyelerini önemli ölçüde düşürdüğü, aynı zamanda bu hayvanlardaki patolojik böbrek değişikliklerini azalttığı gösterilmiştir50. β-sitosterol, lipid dengesini düzenleyerek ve anti-inflamatuar etkiler göstererek DN'yi dolaylı olarak iyileştirebilir. Huangqi Gegen dekoksiyonundaki (HGD) β-sitosterol bileşenleri, Vasküler Endotelyal Büyüme Faktörü A (VEGFA) ve İnterlökin-6 (IL-6) gibi molekülleri hedefleyerek DN ile ilişkili yolaklara katılır. Bu etkiler arasında; renal fibrozisi ve renal korteks hasarını azaltan, renal fonksiyonu iyileştiren ve sonuç olarak DN progresyonunu geciktiren anti-inflamatuar, anti-apoptotik, antioksidan ve otofajik etkiler yer almaktadır51. Bir başka doğal flavonoid olan eriodiktiyolün, oksidatif stresi ve inflamasyonu dengeleyerek iskemik inme'ye (IS) karşı koruma sağladığı gösterilmiştir52. DN bağlamında eriodiktiyol üzerine sınırlı sayıda çalışma olsa da, hastalığın inflamasyon ve oksidatif stres ile ilişkisi göz önüne alındığında, benzer mekanizmalar aracılığıyla DN'yi hafifletebileceği hipotezi kurulmuştur. Bu çalışmadaki ilaç tahminleri ayrıca Taksifolin, β-sitosterol ve eriodiktiyolün DN'de potansiyel terapötik etkileri olduğunu önermektedir. Moleküler kenetleme, olası bağlanma konformasyonlarını ve afinitelerini öngörür; ancak in vivo hedef etkileşimini, biyoyararlanımı veya farmakolojik aktiviteyi kanıtlamaz. Bu sonuçlar, onaylayıcı olmaktan ziyade hipotez oluşturucu olarak yorumlanmalıdır.
Diyabetik nefropati (DN) üzerine yapılan önceki ağ farmakolojisi çalışmaları büyük ölçüde bireysel sinyal yolaklarına (örneğin, AGE-RAGE, PI3K-AKT ve MAPK) odaklanmış; mitokondriyal disfonksiyonu dikkate almamış veya biyobelirteçleri önceliklendirmek için çok modelli makine öğrenimi uygulamamıştır. Çalışmamız üç metodolojik ve biyolojik yenilik sunmaktadır: (1) transkriptom genelindeki farklı şekilde eksprese edilen genlerin (DEG'ler) mitokondriyal gen setleri ve ilaç-hedef tahminleri ile entegrasyonu; (2) sağlam adayları önceliklendirmek için veri seti arası doğrulama ile dört farklı makine öğrenimi modelinin uygulanması ve (3) DN mitokondriyal bağlamlarında daha az çalışılan peroksizomal (CAT) ve monoamin oksidaz (MAOA/MAOB) yolaklarının aday terapötik eksenler olarak tanımlanması.
Fare böbreğinde MaoB ve Fabp1 ekspresyonunda istatistiksel olarak anlamlı değişikliklerin görülmemesi birkaç faktöre bağlı olabilir. İlk olarak, adayların önceliklendirilmesi için kullanılan iki Gene Expression Omnibus (GEO) veri seti insan böbrek örneklerinden (sırasıyla tüm böbrek ve glomerulus) türetilmişken, hayvan deneyimizde fare renal dokusu kullanılmıştır. Gen düzenlemesindeki türe özgü farklılıklar, bazal ekspresyon düzeylerini ve ilaca verilen yanıtı etkileyebilir. İkinci olarak, nispeten küçük örneklem büyüklüğü (grup başına n = 6), orta düzeydeki etki büyüklüklerini tespit etmek için gereken istatistiksel gücü sınırlamış olabilir. Üçüncü olarak, dokular tedaviden 8 hafta sonra toplanmıştır; bu durum, MaoB ve Fabp1'deki transkriptomik değişiklikleri tespit etmek için en uygun zaman aralığını yakalayamamış olabilir, çünkü bu genler mRNA düzeyinden ziyade protein veya aktivite düzeyinde düzenleniyor olabilir. Dördüncü olarak, tüm böbrek ile belirli kompartmanlar arasındaki doku heterojenliği tutarsızlıklara katkıda bulunmuş olabilir. Bu olasılıkların daha ayrıntılı bir şekilde araştırılması gerekmektedir.
Bu çalışma, DN'de LLF için potansiyel mitokondriyal aday genler olarak CAT, FABP1, MAOA ve MAOB'yi belirlemek amacıyla entegratif bir biyoinformatik ve makine öğrenimi yaklaşımı kullanmıştır. In vivo deneyler, LLF'nin böbrek dokusunda CAT ve MAOA'yı önemli ölçüde yukarı regüle ettiğini doğrulamış ve bu genlerin daha ileri mekanistik ve terapötik araştırmalar için gelecek vaat eden hedefler olduğunu ortaya koymuştur. Buna karşılık, MAOB ve FABP1 aynı yönde anlamlı olmayan eğilimler göstermiş, bu da hesaplamalı tahminlere öncelik verilirken deneysel doğrulamanın önemini vurgulamıştır. Bu bulgular, DN'de mitokondri ile ilişkili terapötik stratejilerin araştırılacağı gelecek çalışmalar için bir temel oluşturmaktadır.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu araştırma boyunca bizi destekleyen ve yardımcı olan tüm kişi ve kuruluşlara içten şükranlarımızı sunarız. Bu çalışma, Çin Ulusal Doğal Bilimler Vakfı (No.81973486 ve 82173974), Shanxi Eyaleti Geleneksel Çin Tıbbı İdaresi araştırma projeleri (No.2024ZYYA021), Shanxi Çin Tıbbı Üniversitesi Disiplin Projesi (No.2026XK24) ve Shandong Çin Tıbbı Üniversitesi Bilimsel Araştırma Fonu projesi (No. KYZK2024Q13) tarafından desteklenmiştir. Botanik materyali doğrulayan Shanxi Çin Tıbbı Üniversitesi'nden Doçent Qinqing Li'ye teşekkür ederiz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| %4'lük Paraformaldehit Doku Tespit Çözeltisi | Saiyin Biotechnology Co., Ltd. | 71033600 | |
| Mutlak Etanol | Sinopharm Chemical Reagent Co., Ltd. | 10009218 | |
| Kan Glukoz Ölçüm Cihazı | Sinocare Inc. | GA-3 | |
| Kan Üre Azotu (BUN) Analiz Kiti | Nanjing Jianwei Bioengineering Institute | C03-2-1 | |
| C57BLKS/J db/db fareleri | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-0013 | |
| C57BLKS/J db/m fareleri | Changzhou Cavens Experimental Animal Co., Ltd. | SCXK (Su) 2021-013 | |
| Santrifüj | Hunan Xiangyi Laboratory Instrument Development Co., Ltd. | HI650 | |
| Kloral Hidrat | Shanghai Aladdin Biochemical Technology Co., Ltd. | 302-17-0 | |
| Cytoscape (v3.9.0) | https://cytoscape.org | ||
| m için veri tabanı6Bir modifikasyon tahmini | http://www.cuilab.cn/sramp/ | ||
| Geleneksel Çin Tıbbındaki Aktif Bileşenler Veritabanı | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| ENCORI / Starbase | https://starbase.sysu.edu.cn/ | ||
| Gen İfade Omisi (Gene Expression Omnibus - GEO) | https://www.ncbi.nlm.nih.gov/geo/ | ||
| Hematoksilin ve eosin (HE) boyama kiti | Servicebio | C0105S | |
| Yüksek Hızlı Santrifüj | Labnet, ABD | C2500-R-230V | |
| İmmün İnfiltrasyon Analiz Aracı | https://cibersort.stanford.edu/ | ||
| Ligustri Lucidi Fructus | Sichuan Quanyirun Biotechnology Co., Ltd. | 20240506 | |
| Manyetik Karıştırıcı | Jintan Zhongtian Instrument Factory, Jiangsu | T8-1 | |
| Mikroskop | Olympus | BX53 | |
| Mikrotom | Leica, Almanya | RM 2016 | |
| Mikro-hacim Spektrofotometre | Hangzhou Aosheng Instrument Co., Ltd. | Nano-30 | |
| miRNet | https://www.mirnet.ca | ||
| MitoCarta 3.0 | https://www.broadinstitute.org/mitocarta | ||
| Model Interpretation R Paketi | https://cran.r-project.org/package=DALEX | ||
| Moleküler Kenetleme Platformu | http://clab.labshare.cn/cb-dock/ | ||
| Fare Mikroalbüminüri ELISA Kiti | Hassas Test | EM0632 | |
| Fare Mikroalbüminüri Test Şeridi | Guangzhou Huadu Gaoerbao Biotechnology Co., Ltd. | 20211203 | |
| Fare Serum Kreatinin ELISA Kiti | Abmart | AB590A | |
| MSigDB | https://www.gsea-msigdb.org/gsea/msigdb/ | ||
| PCR Termal Döngüleyici | Roche | Roche LightCycler 480 | |
| R yazılımı (v4.2.2) + R paketleri | https://www.r-project.org / CRAN/Bioconductor | ||
| RCSB PDB | https://www.rcsb.org | ||
| RNA Ekstraksiyon Kiti | Beijing Jumei Biotech Co., Ltd. | MF-036-01 | |
| RPISeq | http://pridb.gdcb.iastate.edu/RPISeq/ | ||
| RT-qPCR Kiti | Beijing Jumei Biotech Co., Ltd. | MF949-T | |
| Salidrosid | Sichuan Quanyirun Biotechnology Co., Ltd. | 20211009 | |
| Serum Kreatinin Analiz Kiti | Nanjing Jianwei Biyoengineering Enstitüsü | C01-2-1 | |
| SPF hayvan tesisi | Shanxi Geleneksel Çin Tıbbı Üniversitesi | ||
| SRAMP | http://www.cuilab.cn/sramp/ | ||
| Lütfen çevirilecek metni (STRING) sağlayın. Metni ilettiğinizde, belirttiğiniz tüm akademik ve teknik kriterlere uygun olarak profesyonel Türkçe çevirisini gerçekleştireceğim. | https://cn.string-db.org/ | ||
| SwissTargetPrediction | http://www.swisstargetprediction.ch/ | ||
| TCMSP | http://sm.nwsuaf.edu.cn/lsp/tcmsp.php | ||
| Tezhi Pigan | Sichuan Quanyirun Biotechnology Co., Ltd. | 20210602 | |
| Doku Yüzdürme Havuzu | Wuhan Junjie | JK-6 |
Kaynaklar
- Thipsawat S. Early detection of diabetic nephropathy in patient with type 2 diabetes mellitus: a review of the literature. Diabetes Vasc Dis Res. 2021;18(6):14791641211058856.
- Kanwar YS, Sun L, Xie P, Liu FY, Chen S. A glimpse of various pathogenetic mechanisms of diabetic nephropathy. Annu Rev Pathol. 2011;6:395-423.
- Santulli G, et al. Prediabetes increases the risk of frailty in prefrail older adults with hypertension: beneficial effects of metformin. Hypertension. 2024;81(7):1637-43.
- Jin Q, et al. Oxidative stress and inflammation in diabetic nephropathy: role of polyphenols. Front Immunol. 2023;14:1185317.
- Alicic RZ, Rooney MT, Tuttle KR. Diabetic kidney disease: challenges, progress, and possibilities. Clin J Am Soc Nephrol. 2017;12(12):2032-45.
- Harrington JS, et al. Mitochondria in health, disease, and aging. Physiol Rev. 2023;103(4):2349-422.
- Peña FJ, et al. An integrated overview on the regulation of sperm metabolism (glycolysis-Krebs cycle-oxidative phosphorylation). Anim Reprod Sci. 2022;246:106805.
- de Mello AH, Costa AB, Engel JDG, Rezin GT. Mitochondrial dysfunction in obesity. Life Sci. 2018;192:26-32.
- Shen Y, et al. Notoginsenoside Fc, a novel renoprotective agent, ameliorates glomerular endothelial cells pyroptosis and mitochondrial dysfunction in diabetic nephropathy through regulating HMGCS2 pathway. Phytomedicine. 2024;126:155445.
- Zhang PN, et al. Mitochondrial dysfunction and diabetic nephropathy: nontraditional therapeutic opportunities. J Diabetes Res. 2021;2021:1010268.
- Zhang JL, et al. Structural characterization and protective effect against renal fibrosis of polysaccharide from Ligustrum lucidum Ait. J Ethnopharmacol. 2023;302(Pt A):115898.
- Luan R, et al. The protective effect of ethyl acetate and n-butanol fractions of wine-steamed Ligustri Lucidi Fructus on diabetic nephropathy in rats. Evid Based Complement Alternat Med. 2021;2021:6512242.
- Luan R, et al. Pharmacodynamics, pharmacokinetics, and kidney distribution of raw and wine-steamed Ligustri Lucidi Fructus extracts in diabetic nephropathy rats. Molecules. 2023;28(2):791.
- Seo HL, et al. Liqustri lucidi Fructus inhibits hepatic injury and functions as an antioxidant by activation of AMP-activated protein kinase in vivo and in vitro. Chem Biol Interact. 2017;262:57-68.
- Yan M, et al. Identification of pyroptosis-related genes and potential drugs in diabetic nephropathy. J Transl Med. 2023;21(1):490.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Gustavsson EK, et al. ggtranscript: an R package for the visualization and interpretation of transcript isoforms using ggplot2. Bioinformatics. 2022;38(15):3844-6.
- Gu Z, Eils R, Schlesner M. Complex heatmaps reveal patterns and correlations in multidimensional genomic data. Bioinformatics. 2016;32(18):2847-9.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-504.
- Wu T, et al. clusterProfiler 4.0: a universal enrichment tool for interpreting omics data. Innovation (Camb). 2021;2(3):100141.
- Dong H, et al. Identification through machine learning of potential immune-related gene biomarkers associated with immune cell infiltration in myocardial infarction. BMC Cardiovasc Disord. 2023;23(1):163.
- Pei B, et al. The development of prediction model for cuffed tracheal tube size from the middle finger in pediatrics: a concise and feasible approach. Transl Pediatr. 2023;12(12):2222-31.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77.
- Robles-Jimenez LE, et al. Worldwide traceability of antibiotic residues from livestock in wastewater and soil: a systematic review. Animals (Basel). 2021;12(1):60.
- Wang Y, et al. Bioinformatics analysis combined with clinical sample screening reveals that leptin may be a biomarker of preeclampsia. Front Physiol. 2022;13:1031950.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2^−ΔΔCT method. Methods. 2001;25(4):402-8.
- Klejborowska G, et al. Synthesis, anticancer activity and molecular docking studies of N-deacetylthiocolchicine and 4-iodo-N-deacetylthiocolchicine derivatives. Bioorg Med Chem. 2021;32:116014.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659-61.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Mazzieri A, Porcellati F, Timio F, Reboldi G. Molecular targets of novel therapeutics for diabetic kidney disease: a new era of nephroprotection. Int J Mol Sci. 2024;25(7):3969.
- Breyer MD, Susztak K. The next generation of therapeutics for chronic kidney disease. Nat Rev Drug Discov. 2016;15(8):568-88.
- Leoncini G, et al. Blood pressure reduction and RAAS inhibition in diabetic kidney disease: therapeutic potentials and limitations. J Nephrol. 2020;33(5):949-63.
- Pofi R, et al. Diabetic nephropathy: focus on current and future therapeutic strategies. Curr Drug Metab. 2016;17(5):497-502.
- Arellano Buendía AS, et al. Immunomodulatory effects of the nutraceutical garlic derivative allicin in the progression of diabetic nephropathy. Int J Mol Sci. 2018;19(10):3107.
- Zhang X, Agborbesong E, Li X. The role of mitochondria in acute kidney injury and chronic kidney disease and its therapeutic potential. Int J Mol Sci. 2021;22(20):11253.
- Liu Y, et al. DsbA-L interacting with catalase in peroxisome improves tubular oxidative damage in diabetic nephropathy. Redox Biol. 2023;66:102855.
- Zhong Y, et al. Jujuboside A ameliorates high fat diet and streptozotocin induced diabetic nephropathy via suppressing oxidative stress, apoptosis, and enhancing autophagy. Food Chem Toxicol. 2022;159:112697.
- Zhong Y, et al. Dioscin relieves diabetic nephropathy via suppressing oxidative stress and apoptosis, and improving mitochondrial quality and quantity control. Food Funct. 2022;13(6):3660-73.
- Issac PK, et al. Protective effect of morin by targeting mitochondrial reactive oxygen species induced by hydrogen peroxide demonstrated at a molecular level in MDCK epithelial cells. Mol Biol Rep. 2022;49(6):4269-79.
- Abo El-Asrar M, Ismail EAR, Elnhrawy AM, Thabet RA. Fatty acid binding protein 1 (FABP1) and fatty acid binding protein 2 (FABP2) as a link between diabetic nephropathy and subclinical atherosclerosis in children and adolescents with type 1 diabetes. J Diabetes Complications. 2023;37(3):108414.
- Gholaminejad A, Fathalipour M, Roointan A. Comprehensive analysis of diabetic nephropathy expression profile based on weighted gene co-expression network analysis algorithm. BMC Nephrol. 2021;22(1):245.
- Tanaka M, et al. Urinary fatty acid-binding protein 4 is a promising biomarker for glomerular damage in patients with diabetes mellitus. J Diabetes Investig. 2025;16(4):670-9.
- Liu Y, et al. Gastric cancer adapts high lipid microenvironment via suppressing PPARG-FABP1 axis after arriving in the lymph node. Redox Biol. 2025;85:103759.
- Borús DL, et al. Fatty acid binding protein 1 (FABP1) depletion promotes an oxidative metabolic shift in Caco-2 colorectal cancer cells. Biochim Biophys Acta Mol Cell Biol Lipids. 2025;1870(7):159661.
- Chu Y, et al. Glutathione peroxidase-1 overexpression reduces oxidative stress, and improves pathology and proteome remodeling in the kidneys of old mice. Aging Cell. 2020;19(6):e13154.
- Zhang F, et al. Mesenchymal stem cells alleviate rat diabetic nephropathy by suppressing CD103+ DCs-mediated CD8+ T cell responses. J Cell Mol Med. 2020;24(10):5817-31.
- Cao Q, et al. Renal F4/80+ CD11c+ mononuclear phagocytes display phenotypic and functional characteristics of macrophages in health and in adriamycin nephropathy. J Am Soc Nephrol. 2015;26(2):349-63.
- Zhou W, et al. The landscape of immune cell infiltration in the glomerulus of diabetic nephropathy: evidence based on bioinformatics. BMC Nephrol. 2022;23(1):303.
- Bloch K, Shichman E, Vorobeychik M, Bloch D, Vardi P. Catalase expression in pancreatic alpha cells of diabetic and non-diabetic mice. Histochem Cell Biol. 2007;127(2):227-32.
- Zhao Y, et al. Taxifolin attenuates diabetic nephropathy in streptozotocin-induced diabetic rats. Am J Transl Res. 2018;10(4):1205-10.
- Ding S, Wang W, Song X, Ma H. Based on network pharmacology and molecular docking to explore the underlying mechanism of Huangqi Gegen Decoction for treating diabetic nephropathy. Evid Based Complement Alternat Med. 2021;2021:9928282.
- Guo S, et al. Correction: Eriodictyol: a review of its pharmacological activities and molecular mechanisms related to ischemic stroke. Food Funct. 2023;14(10):4949.