Bu protokol, kriyojenik elektron mikroskopisi (kriyo-EM) için Ni-NTA lipid monotabakalı affinite ızgaralarının laboratuvar hazırlıklarını tanımlar. Bu iletim elektron mikroskopisi (TEM) ızgara yüzey modifikasyonu, çözünür polihistidin etiketli protein komplekslerini seçici olarak yakalarak, seyreltilmiş örnekleri yoğunlaştırarak ve parçacıkları hava-su arayüzünden uzaklaştırarak yapısal belirlemeyi iyileştirir.
Yöntem makalesi
Çözünür polihistidin etiketli protein komplekslerinin kriyo-EM yapısal analizi için Ni-NTA lipid monotabakalı afinite ızgaralarının ayrıntılı hazırlanması
Bu makalede
Özet
Özet
Kriyo-numune hazırlanması, protein komplekslerinin yüksek çözünürlüklü yapısal belirlenmesi için büyük bir teknik zorluk olmaya devam etmektedir. Hava-su arayüzündeki etkileşimler, protein denatürasyonuna veya tercih edilen yönelime neden olabilir ve böylece ulaşılabilir çözünürlüğü sınırlayabilir. Ayrıca, seyreltilmiş örnekler veya düşük bolluklu hedefler genellikle yetersiz parçacık yoğunluğu gösterir ve bu da verimli veri toplamayı engeller. Lipid bazlı affinite ızgaraları, bu sınırlamaları ele almak için etkili bir strateji sunar. Bu makale, çözünür polihistidin etiketli protein komplekslerinin yapısal analizi için Ni-NTA lipid monotabakalı afinite ızgaralarının hazırlanmasına yönelik adım adım bir protokolü sunmaktadır. Protokolün ana aşamaları arasında lipid karışımı hazırlanması, lipid karışımının rezervuar tampon yüzeyine dökülmesi, ortaya çıkan lipid monotabakasının TEM ızgaralarına aktarılması, isteğe bağlı olarak lipid ızgaralarının 1 haftaya kadar kurutup saklanması ve lipid ızgaralarının numuneyle birlikte kriyo-dip edilmesi yer alır. Bu protokolün başarılı uygulanması, lipid monolayer olmadan hazırlanan ızgaralara göre daha iyi dağılmış parçacıkların tek bir tabakasına sahip kriyo-ızgaralar elde eder. İşlem, kriyo-piston, kimyasal duman davlumbazı ve kriyo-numune hazırlamada yaygın kullanılan standart aletlerle donatılmış bir laboratuvarda birkaç saat içinde tamamlanabilir. Ayrıntılı yazılı talimatları video gösterimleriyle birleştirerek, bu çalışma, kriyo-EM topluluğunda Ni-NTA lipid tek katmanlı affinite ızgaralarının erişilebilirliğini, tekrarlanabilirliğini ve daha geniş şekilde benimsenmesini artırmayı amaçlamaktadır.
Giriş
Protein yapısının belirlenmesi için deneysel teknikler, X-ışını kristallografiyası, nükleer manyetik rezonans (NMR) ve kriyojenik elektron mikroskobu (kriyo-EM) gibi yöntemlerin hepsi dikkatli örnek hazırlanmasına dayanır. Tek parçacık analizinde (SPA) kriyo-EM'de, örnek kalitesi genellikle nihai yeniden yapılandırmanın çözünürlüğünü sınırlayan birincil faktördür. Kriyo-iletim elektron mikroskopları (kriyo-TEM) ve doğrudan elektron dedektörlerindeki teknolojik gelişmeler, veri toplama verimliliğini ve ulaşılabilir çözünürlüğü artırmaya devam ettikçe, yüksek çözünürlüklü kriyo-EM'deki temel zorluk giderek görüntü alımından örnek hazırlama ve 1,2,3,4,5,6,7 kalitesine kaymaktadır.
Geleneksel kriyo-ızgara hazırlığı genellikle birkaç mikrolitre numunenin bir iletim elektron mikroskopu (TEM) ızgarasının yüzeyine uygulanmasını, ızgarayı filtre kağıdıyla lekelenmesini ve genellikle sıvı etan veya propan-etan karışımı olan bir kriyojene hızla daldırılmasını içerir. İdeal olarak, ortaya çıkan kriyo-ızgara, monodispersiyalı parçacıklara sahip ince cam buzu içerir. Pratikte, bu sonuca ulaşmak genellikle zordur ve yüksek çözünürlüklü yapısal belirleme için uygun ızgaralar oluşturmak için birden fazla optimizasyon turu gerektirebilir. Yaygın sorunlar arasında hava-su arayüzünde (AWI)8,9, tercih edilen yönelim10 ve buz tabakasında düşük parçacık yoğunluğuyer alır. Son zorluk, özellikle yüksek dinamik, kısa ömürlü veya mikromolyar konsantrasyonlarda izole edilmesi zor olan protein kompleksleri için önemlidir. Bu sınırlamaları gidermek için grafenoksit 13 sürekli ultraince karbon14 ve biyotinile ulaşmış hedefleri yakalamak için streptavidin kaplı nanoboncuklar dahil olmak üzere çeşitli stratejilergeliştirilmiştir 15.
Alternatif bir yaklaşım, hedef molekülleri seçici olarak bağlamak için tasarlanmış affinite yüzeyleriyle TEM ızgaralarının değiştirilmesini içerir. Bu afinite ızgaraları, parçacıkları ızgara yüzeyinde yoğunlaştırırken AWI'ye maruziyeti azaltarak parçacık dağılımını iyileştirir ve yapısal bütünlüğü korur. Ayrıca, konsantrasyon etkisi, seyreltilmiş veya heterojen örneklerden düşük bolluklu makromoleküler kompleksleri zenginleştirebilir.
Son on yılda, SPA kriyo-EM için birkaç affinity grid stratejisi geliştirilmiştir. Bu yaklaşımlar, TEM ızgara yüzeyi modifikasyonu ve buna karşılık gelen işlevselleştirme stratejisi ile kategorize edilebilir. Yaygın kullanılan yüzeyler arasında ultra ince amorf karbon14 grafen veya grafenoksit 13,16, lipid monokatmanlar veya lipidnanotüpler 17,18 ve lipid monotabakalar üzerinde yetiştirilen iki boyutlu streptavidinkristalleri 19,20 bulunur. Bu yaklaşımlar arasında, iki boyutlu streptavidin afinite ızgaraları, yüksek çözünürlüklü protein yapısının belirlenmesini mümkün kaçırmadaözellikle başarılı olmuştur 21,22,23,24,25,26,27,28,29 . İlgili metodolojiler arasında, yakın zamanda çift zincirli DNA'ya (dsDNA)30 bağlı mini-kromozom bakım kompleksinin yapısını belirlemek için uygulanan lipid monotabakalara bağlı tek parçacıklı streptavidin kullanımı yer almaktadır.
Bu gelişmelere rağmen, yakınlık ızgarası hazırlamak için erişilebilir ve tekrarlanabilir yöntemler sınırlı kalmaktadır. Her tekniğin seçici hedef bağlaması için kendine özgü örnek gereksinimleri vardır ve hiçbiri ticari olarak mevcut değildir, bu nedenle özel üretim protokolleri ve kimyasal modifikasyonlar gereklidir. Bu ek adımlar, SPA kriyo-EM iş akışlarının teknik karmaşıklığını önemli ölçüde artırabilir. Buna göre, bu makale, burada tanımlanan affinite grid teknolojisinin hazırlanmasını kolaylaştırmak amacıyla ayrıntılı ve adım adım bir protokol sunmaktadır. Ni-NTA lipid monotabakalı afinite ızgara protokolü, daha öncerutin olarak uygulanmıştır ve geniş moleküler ağırlık aralığında (97–470 kDa) çözünür polihistidin etiketli protein komplekslerinin kriyo-EM yapısal çalışmaları için kolayca benimsenebilir (Şekil 1). Bu yöntem, deterjan içermeyen tamponlarda 0,05 ila 0,2 mg/mL arasında değişen protein konsantrasyonlarıyla uyumludur.
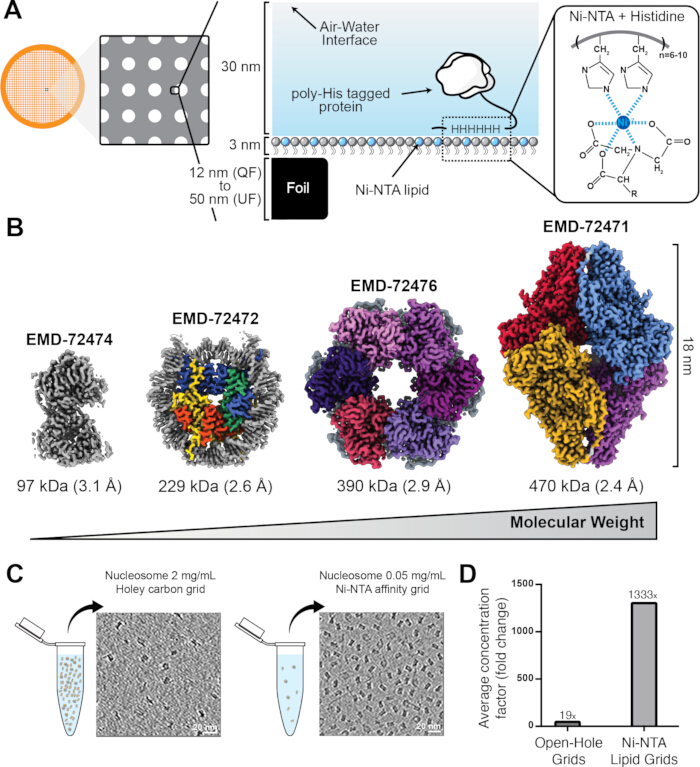
Şekil 1: Ni-NTA lipid affinite ızgara tasarımının genel görünümü. (A) %20 Ni-NTA lipid kriyo-ızgarasının şeması. Kriyo-ızgara solda gösterilmiştir ve lipid monotabakasının kesitsel görünümü karbon filminin, lipid monolayerın, vitreus buzunun ve bağlı parçacıkların (ortada) boyutlarını gösterir. Histidin yan zincirleri ile Ni-NTA lipidleri arasındaki etkileşim sağda gösterilmiştir. (B) Lipid affinite ızgaraları kullanılarak çözülen polihistidin etiketli protein örnekleri. Haritalar birbirine göre ölçekli olarak çizilir; moleküler ağırlık, boyut, çözünürlük ve EMDB erişim numarası gösterilir. (C) Polihistidin etiketli nükleozomların temsil tomografik dilimleri, 2 mg/mL (sağda) lipid olmayan kriyo-ızgaralar kullanılarak ve 0,05 mg/mL (solda) Ni-NTA lipid affinity cryo-grid'ler kullanılarak hazırlanır. (D) Lipid olmayan kriyo-ızgaraların Ni-NTA lipid affinite kriyo-ızgaralarıyla karşılaştırıldığında ortalama konsantrasyon faktörü, lipid filminin polihistidin etiketli proteinleri hava-su arayüzünden (AWI) uzaklaştırma yeteneğini göstermektedir. Bu figürün bazı bölümleri, Skrajna ve ark.17'deki 1A,B ve 2A,B şekillerinden Elsevier'in izniyle uyarlanmıştır. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Protokol
Bu çalışma insan katılımcıları, klinik veriler veya canlı hayvanları içermedi. Reaktifler ve kullanılan ekipmanlar Malzeme Tablosu'nda listelenmiştir.
NOT: DOPC, 18:1 (Δ9-cis) PC'yi ifade eder. Ni-NTA lipid, 18:1 DGS-NTA(Ni) anlamına gelir. Düşük tuzlu tampon ise 10 mM HEPES (pH 7.4) ve 50 mM NaCl anlamına gelir. Sulandırma tamponu ise 20 mM HEPES (pH 7.4) ve 150 mM NaCl anlamına gelir.
1. Yeniden kullanılabilir cam eşyaların yıkanması (~30 dakika)
- İki küçük petri kabı, iki küçük petri kabı kapağı, bir 25 mL hacimli şişe ve bir 1 mL hacimli şişe ile bir dondurucu topla. Eşyaları lavabonun yanına koyun.
- Anyonik yüzeyaktif madde tozunu 11,4 L'lik plastik bir küvette sıcak musluk suyunda çözürün.
- Bardakları yüzey aktif madde çözeltisine nazikçe batırın.
- Nitril eldiven takarken, erişilebilir tüm cam yüzeyleri laboratuvar gereçleri fırçasıyla ovalın. Ultra saf suyla iyice durulayın.
- Cam eşyalarını kağıt havlulara hafifçe vurarak kalan suyu çıkarın.
- Bardakları saç kurutma makinesiyle kurutmayın, görünür nem kalmayana kadar.
NOT: Yıkanmış cam eşyaları temiz, tozsuz bir ortamda saklayın.
2. Lipidlerin oda sıcaklığına (1–4 saat) dengelenmesi
NOT: Eğer lipid stokları önceden hazırlanmışsa, bu bölümü atlayın.
- Bir kapalı ampül 25 mg DOPC tozu ve bir kapalı ampül 1 mg Ni-NTA lipid tozu kimyasal bir duman kapüşonuna yerleştirin.
- Lipidleri en az 1 saat oda sıcaklığında dengeleyin.
3. Çözücü temizleme istasyonunu kurmak (~10 dakika)
DIKKAT: Kloroform, merkezi sinir sistemi depresan ve deri, göz ve solunum solunumunu tahriş eden tehlikeli ve uçucu bir sıvıdır. 100 μL'den fazla kloroformu kimyasal duman davlumunda içeren tüm adımları eldiven, laboratuvar önlüğü ve göz koruma gibi uygun kişisel koruyucu ekipman (PPE) takarak gerçekleştirin. Kirlenmiş nitril eldivenleri maruziyetten sonra 1 dakika içinde çıkarıp atabilirsiniz, çünkü kloroform nitrili hızla nüfuz eder. Kloroform atıklarını diğer kimyasal atık akışlarıyla birleştirmeyin.
- %99,8 kloroform, bir kapalı kloroform atık şişesi, %99,5 etanol, bir kapalı etanol atık şişesi, bir keskin kap, iki küçük petri kabı, iki küçük petri kabı kapı, 1. derece filtre kağıdı içeren bir büyük petri kabı, üç veya daha fazla 1–2 cm2 kendi kendini kapalayan film parçası ve kağıt havlular toplayın. Tüm malzemeleri kimyasal duman davlumbazında düzenleyin (Şekil 2).
- Petri kaplarını 20–30 ml kloroformla durulayın. Durulamayı uygun atık şişesine atın. Etanol ile tekrarlayın. Bulaşıkları havada kurut.
- Bir küçük petri kabını kloroformla, diğerini ise etanol ile doldurun. Buharlaşmanı azaltmak için her iki tabağı da kapatın.
- Deney boyunca, özellikle kloroform gözle görülür şekilde kirleticilerle bulanıklaştığında, petri kaplarını doldurun.
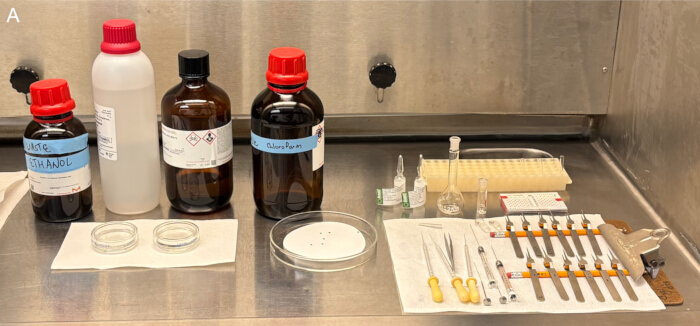
Şekil 2: Lipid karışımı hazırlamak için aletler ve reaktifler içeren kimyasal duman başlıkları. Çözücü temizleme istasyonu ve temizlenen aletler, cam eşyaları ve TEM ızgaralarının görüntüsü. Şişeler soldan sağa: etanol atığı, etanol, kloroform ve kloroform atığı. Petri kapları soldan sağa: filtre kağıdı üzerinde etanol, kloroform ve TEM ızgaraları. Soldan sağa ve yukarıdan aşağıya ek ürünler arasında tüp rafında kültür tüpleri, lipid ampulleri, stoperli hacimsel şişeler, depolanan TEM ızgaraları, ampullü cam pipetler, ince uçlu cımbızlar, cam şırıngalar ve aralı (kalem sapları) yerleştirilen anti-kahiller cımbızlar bulunur. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
4. Çözücülerle temizleme aletleri, cam eşyaları ve TEM ızgaraları (~20 dakika)
- Bir çift ince uçlu cımbız, on iki çift kendi kapanan anti-kapıllar cımbız, üç cam pipet, bir 25 μL cam şırınga, bir 2,5 μL cam şırınga, bir tüp rafında üç cam kültür tüpü, bir 25 mL hacimli şişe, bir 1 mL hacimli şişe, yirmi ila yirmi beş fenolik kapaklı 3,7 mL dişli cam şişe, ve on iki altın örgülü delikli karbon TEM ızgarası. Malzemeleri kimyasal buhar kapastonuna solvent temizleme istasyonunun yakınına yerleştirin.
NOT: Kullanılmadığında, uç deformasyonunu ve hizalanmayı önlemek için her çift anti-kapiller cımbıza içine bir kalem sapı gibi bir ara parça takın. Bükülmüş cımbızları at. - Cimbizleri birkaç kez kloroforma batırarak temizleyin. Etanol ile tekrarlayın. Hava kurutması.
- Cam pipetleri birkaç kez aspirasyon ve kloroform dağıtarak temizleyin. Etanol ile tekrarlayın. Hava kurutması.
- Şırıngaları aspirasyon ve kloroform dağıtarak temizleyin, ta ki piston düzgün hareket edene kadar. Etanol ile tekrarlayın. Pistonu şırınga namlusundan çıkarın ve hava kurutmayın.
- Kültür tüplerini cam pipetle birkaç kez kloroform ekleyip çıkararak temizleyin. Etanol ile tekrarlayın. Kalıp sıvıyı boruları ters çevirerek ve kağıt havlulara hafifçe vurarak çıkarabilirsiniz. Hava kurutması.
- Hacimsel termosları cam pipetle kloroform ekleyerek, şişeyi kapatarak ve iç yüzeyleri nazikçe çalkalayarak temizleyin. Çözücüyü atık şişesine atın. Etanol ile tekrarlayın. Termosları stopersiz bırakın ve havada kurutulun.
- Şişeleri cam pipetle kloroform ekleyerek, şişenin kapağını kapatarak ve iç yüzeyleri hafifçe çalarak yıkayarak temizleyin. Çözücüyü atın. Etanol ile tekrarlayın. Şişeleri kapapasız bırakın ve havada kurutulun.
- TEM ızgaralarını, güçlendirilmiş dış kenarı ince uçlu cımbızlarla tutarak, karbon filmine zarar vermekten kaçınarak temizleyin. Şebekeleri dikey olarak kloroforma üç kez, ardından üç kez etanole batırın.
- TEM ızgaralarını karbon tarafı üst tarafta filtre kağıdına yerleştirin ve hava ile kurumasına izin verin.
5. Döküm tamponunun soğutulması (>20 dakika)
- En az 50 mL düşük tuzlu tampon buzun üzerine koyun.
- Tamponu en az 20 dakika soğut.
6. DOPC ve Ni-NTA lipid için ayrı 1 mg/mL kloroform stok çözeltilerinin hazırlanması (~20 dakika)
NOT: Lipid stokları önceden hazırlanmışsa, 8 . Bölüm "%80 DOPC/%20 Ni-NTA lipid karışımının hazırlanması" bölümine geçin.
- DOPC ve Ni-NTA lipid tozlarının oda sıcaklığında dengelendiğinden emin olun.
DIKKAT: Jiletler ve kırık camlar keskin tehlikelerdir. Jilet kullanırken ve cam ampulleri kırırken dikkatli olun. - DOPC tozunun görünürlüğünü artırmak için, ampul etiketini bir jiletle kesip soyarak çıkarın. Ni-NTA lipid ampülü için tekrarlayın.
- Her iki elinizle ve keskin kabın üzerinde çalışarak 25 mg DOPC içeren ampulu dikkatlice açın. Ampul boynunu keskin kabına atın. Ampul gövdesini kloroform kabının yanına yerleştirin. 1 mg Ni-NTA lipid ampülü için tekrar edin.
- Eldivenlerden ve çalışma yüzeylerinden cam parçalarını dikkatlice keskin kaba fırçalayın. Hasarlı eldivenleri hemen değiştirin.
- Bir cam pipette kloroform, bir DOBC ve bir Ni-NTA lipid için etiket ekleyin.
- Küçük bir çözücü ile temizlenmiş petri kabını kloroformla doldurun.
- DOPC pipetini kullanarak 2–5 ml klorofom AMSÜL'e aktarın. Çözeltiyi aspirasyon ve dağıtın, alt ve yanlardaki lipid tamamen çözülene kadar.
- DOPC çözümünü DOPC pipeti kullanarak 25 mL'lik hacimli şişeye aktarın. Kloroform pipeti kullanarak şişeyi kloroformla 25 mL nihai hacme getirin.
- DOPC ampulunu keskin kabına atın.
- 1 mL'lik hacimsel şişeye kloroform pipeti kullanarak 1 mL'den az kloroform aktarın.
- Kloroformu 1 mL hacimsel şöleden Ni-NTA lipid ampülüne aktarmak için Ni-NTA lipid pipetini kullanın. Çözeltiyi aspirasyon ve dağıtın, alt ve yanlardaki lipid tamamen çözülene kadar.
- Ni-NTA lipid çözeltisini Ni-NTA lipid pipeti kullanarak 1 mL hacimli şişeye aktarın. Kloroform pipeti kullanarak şişeyi kloroformla son hacmi 1 mL'ye getirin.
- Keskin kabındaki Ni-NTA lipid ampülünü atın.
7. Uzun süreli depolama için küçük lipit alikotları hazırlanır (~15 dakika)
- DOPC pipetini kullanarak 1–2 ml DOPC stokunu birkaç cam şişeye alikotla aktarın. Şişeleri kapalı ve etiketle.
- Ni-NTA lipid pipetini kullanarak 0,2–0,5 mL Ni-NTA lipid stokunu birkaç cam şişeye alkot edin. Şişeleri kapalı ve etiketle.
DIKKAT: Sıvı azot (LN2), başlangıçta kısa bir Leidenfrost etkisi yaratabilen bir kriyojendir ve ardından şiddetli ağrı, uyuşma, su kabarma ve donma belirtilerine neden olabilir. Yaralanma şiddeti, maruz kalma süresiyle artar ve birinci derece yanıklardan dördüncü dereceye kadar 1 dakikadan kısa sürede ilerleyebiliyor. LN2 ile soğutulmuş nesneler benzer yaralanmalara neden olabilir. LN2'de kriyo-numune aletleri aracılığıyla termal iletimi dikkatli kullanın. Sıçramalara karşı koruma için bir yüz kalkanı takın. LN2'ye ellerinizi sokmayın, kriyo-koruyucu eldiven taksanız bile, çünkü hapsolmuş LN2 deriyle temas halinde kalabilir. Yoğunlaşmış atmosferik su buharını LN2 buharı ile karıştırmayın. LN2, görünmez ve kokusuz gaz asfiksantına dönüştürüldüğünde yaklaşık 700× hacim genişler. Tüm LN2 tanklarının ve dewarların basınç birikmesini önlemek için düzgün havalandırıldığından emin olun. LN2'yi sadece iyi havalandırılan alanlarda kullanın ve kullanılmayan LN2'yi kimyasal bir buhar davlumbazında buharlaştırın. - Küçük bir kriyojen dewar'ı LN2 ile doldur.
- Bir aliquot şişesinden kapağı çıkarın, içine azot buharı dökün, şişenin kapağını kapatın ve kendi kendine sızdırmayan filmle kapatın. Tüm aliquot şişeleri için tekrarlayın.
NOT: Lipid aliquot stoklarını −20 °C'de 3 aya kadar saklayın.
8. %80 DOPC/%20 Ni-NTA lipid karışımının hazırlanması (~15 dakika)
- DOPC ve Ni-NTA lipid stok aliquotlarının oda sıcaklığında dengelendiğinden emin olun.
- Bir cam kültür tüpünü DOPC için, birini Ni-NTA lipid için ve birini lipid karışımı için etiketleyin.
- DOPC pipetini kullanarak 50–100 μL (2–3 damla) DOPC stokunu DOPC kültür tüpüne aktarın. Tüpü kendi kendine sızdırmayan filmle mühürleyin.
- Ni-NTA lipid pipetini kullanarak 20–50 μL (1–2 damla) Ni-NTA lipid stokunu Ni-NTA lipid kültür tüpüne aktarın. Tüpü kendi kendine sızdırmayan filmle mühürleyin.
- 25 μL şırıngayı kullanarak 20 μL DOPC aliquotunu şırınge namlusuna çekin. Namluda baloncuk olmadığını doğrulayın ve gerekirse örneği yeniden çekin. Aliquot'u lipid karışımı tüpüne dağıtın. Toplam hacmi 40 μL için bir kez tekrarlayın.
- Şırıngayı kloroformla temizleyin ve ardından etanol kullanın.
- Şırıngayı kullanarak 10 μL Ni-NTA lipid aliquot çekin. Namluda baloncuk olmadığını doğrulayın ve gerekirse örneği yeniden çekin. Aliquot'u lipid karışım tüpüne dağıtın, böylece nihai toplam hacmi 50 μL'ye ulaştırın.
- Lipidleri soruyu birkaç kez aspire edip dağıtarak karıştırın. Tüpü kendi kendine sızdırmayan filmle mühürleyin.
- Şırıngayı kloroformla temizleyin ve ardından etanol kullanın. Hava kurutması.
9. Lipid monolayer döküp TEM ızgaralarına aktarma (~10 dakika)
- Düşük tuzlu tamponun soğutulduğundan emin olun.
- Bir küçük LED lamba, soğutulmuş düşük tuzlu tampon, bir kapaklı tampon atık şişesi, reaktif etanol, bir etanol atık şişesi, bir şişe bir damlalı hint yağı, lipid karışımı, bir küçük petri kabı, bir 2,5 μL şırınga, on iki çift anti-kapiller cımbız, on iki TEM ızgara ve düşük tüylü dokular toplayın. Malzemeleri iyi aydınlatılmış siyah bir tezgah üzerine düzenleyin (Şekil 3).
- Her çift anti-kapiler cımbızın düz kolunu TEM ızgarasının karbon tarafına yönlendirin. Kızgarası güçlendirilmiş dış kenar boyunca sıkıştırın. Tüm ızgaralar için tekrarlayın.
- Küçük petri kabını soğutulmuş düşük tuzlu tampon ile doldurun (Şekil 4A). Tampon yüzeyinin ortasına bir damla hint yağı yerleştirin (Şekil 4B, 4C).
NOT: Aşağıdaki adımları hızlıca geçin çünkü lipid monokatman zamanla castor yağının merkezinden yavaş yavaş uzaklaşır ve bu da transfer verimliliğini azaltır. Sıcaklık dalgalanmaları ve titreşimler bu süreci hızlandırır. - 2.5 μL şırıngayı kullanarak 1 μL lipid karışımı alın. Şırınga iğnesinin ucunu hint yağının ortasına indirin. Lipid karışımını, yüzeyin hemen üzerinde iğne eğiminden asılı damla olarak dağıtın, ardından damlayı gıçağı gayrimetre hafifçe dokundurun (Şekil 4D).
- LED lambayı kullanarak 2–3 cm çapında düz bir lipid dairesinin oluşumunu doğrulayın ve etrafında bir hint yağı halkası var (Şekil 4E). Bu morfoloji gözlemlenmezse, döküm kabını sıfırlayarak tamponu atıp reaktif etanol ile durulayın, düşük tüy içeren dokularla kurutunuzu ve düşük tuzlu tampon, hint yağı ve lipid karışımını tekrar uygulayarak yeniden ayarlayın.
NOT: Fazla hint yağı lipid monotabakasının oluşumunu engellerken, yetersiz hint yağı tek tabakayı içermez. Lipid akışkanlığı sıcaklığa bağlıdır. Tampon çok soğuksa, lipid tek tabakaya yayılmaz. Tampon çok sıcaksa, lipid ve hint yağı çanak kenarına doğru hareket eder ve çöker. Optimum lipid yayımı için soğutulmuş tamponu oda sıcaklığındaki petri kabına dökün. Her ızgara transferinden sonra dökme tabağını gerektiği gibi sıfırlayın. Taze tampon eklemeden önce dökme kabının tamamen yağdan arındığından emin olun. - Lipid monokatmanını, kelepçeli TEM ızgarasını karbon tarafı aşağıya bakacak şekilde lipid dökümünün merkezine indirerek TEM ızgarasına aktarın. Tüm karbon yüzeyini lipid monotabakasına nazikçe dokundurun, şebekârayı suya battırmadan veya serbest bırakmayın (Şekil 4F).
- Tam sıvı kapsamını ve hint yağının yokluğunu doğrulamak için lipid ızgarasını inceleyin (Şekil 5). Yağlı ızgaraları at.
- Tüm TEM ızgaraları için transfer prosedürünü tekrarlayın.
NOT: Sıkıştırılmış lipid ızgaralar 5–10 dakika içinde kuruyabilir. Lipid ızgaraları, rehidrasyondan önce gece boyunca tezgahın üzerinde sıkıştırılmış kalabilir. Alternatif olarak, kurutulmuş lipid ızgaralar ızgara kutusuna konup oda sıcaklığında 1 haftaya kadar kurutucu bir kurutucuda saklanabilir, ardından tekrar sımmar ve yeniden hidrasyon yapılabilir.
KRITİK: Sadece 2 saat içinde daldırma gerçekleşecekse devam edin. Aksi takdirde, kalan adımları geciktirin.
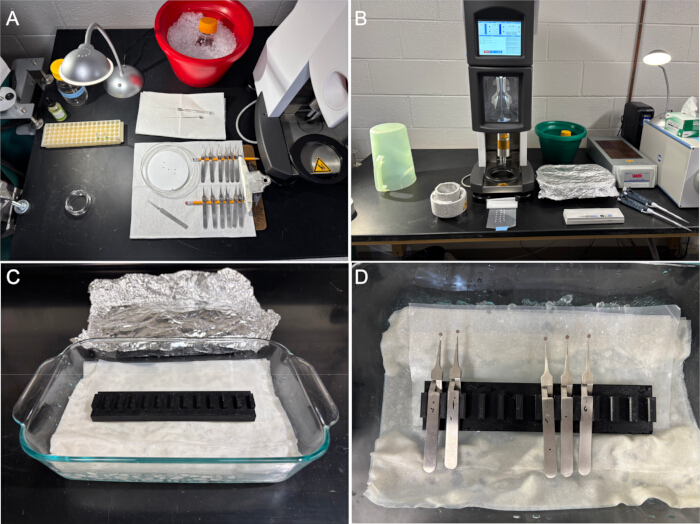
Şekil 3: Lipid monolayers dökümü ve dip dondurma için tezgah kurulumu. (A) Soldan sağa ve yukarıdan aşağıya gösterilen ürünler arasında bir hint yağı damlası şişesi, tampon atık şişesi, LED lamba, buz üzerinde soğutulmuş düşük tuzlu tampon, lipid alikotları ve lipid karışımı içeren tüp rafı, 2,5 μL cam şırınga, boş petri kabı, filtre kağıdı üzerinde TEM ızgaraları bulunan petri kabı, ince uçlu cımbızlar ve aralı anti-kapiller cımbızlar bulunur. (B) Gösterilen ürünler arasında soğutulan, nemlendirilmiş bir kriyo-piston, monte edilmiş bir kriyo-piston tenceresi, seyreltme tamponu ve numune içeren bir buz kovası, folyo kaplı tezgah üstü nem odası, seyreltme tampon damlaları hatları olan kapalı, kendi kendine mühürlenen bir film, kriyo-piston cımbızları ve mikropipetler bulunur. (C) Buz, ıslak kağıt havlular, kendini kapalayan film ve tezgah üstü versiyonu cımbız tutucu içeren tezgah üstü nem odası. (D) Tezgah üstü nem odasının içinde anti-kapiller cımbızlarla sıkıştırılmış lipid ızgaraları. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
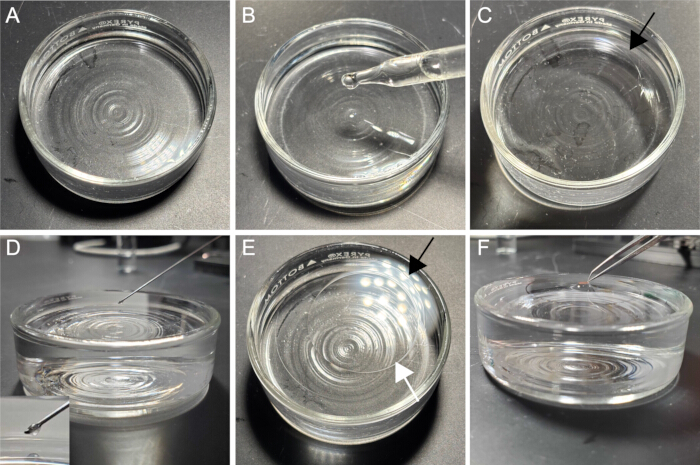
Şekil 4: Bir lipid monolayer döküp TEM ızgaralarına aktarılması. (A) Düşük tuzlu tampon ile doldurulmuş döküm kabı. (B) Döküm kabına 1 damla hint yağı verilmesi. (C) Tampon yüzeyinde yüzen hint yağı çemberi; Siyah ok, hint yağı sınırını gösterir. (D) Hint yağının üzerinde merkezlenmiş ve eğim aşağıya bakan şırınga iğnesi; İğne ucundan asılı olarak 1 μL lipid karışımı damlası. (E) Hint yağı halkası içinde yayılmış lipid karışımı; Siyah ok hint yağı sınırını, beyaz ok ise lipid monolayer sınırını gösterir. (F) Lipid monolayer'ın TEM ızgarasının karbon tarafına aktarılması. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
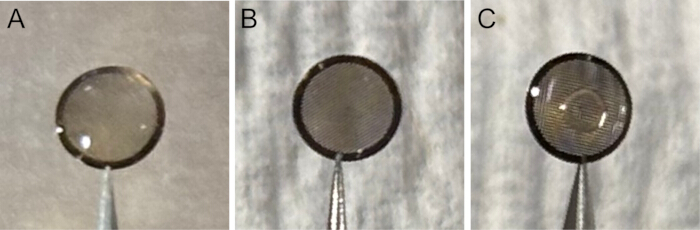
Şekil 5: Lipid monolayer transferinden sonra TEM ızgaralarına örnekler. (A) Tüm ızgara yüzeyine dağıtılmış tampon ile başarılı lipid transferi. (B) 1 saat hava kurutmasından sonra başarılı lipid transferi. (C) Hint yağı ile kirlenmiş lipid transferi, ızgaranın ortasında görünür. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
10. Kriyo-pistonda 4 °C ve %100 nemde (>1 saat) lekesi kağıdı kuluçka
- Kriyo-piston nem odasını 4 °C ve %100 nem olarak ayarlayın.
- Blotlama pedlerine leke kağıdı takın. Lek kağıdını yüksek nemde en az 1 saat kuluçka edin.
11. Sulandırma tamponunun soğutulması (~20 dakika)
- En az 20 mL seyreltme tamponu buzun üzerine koyun.
- Tamponu en az 20 dakika soğut.
12. Lipid ızgaralarında kuluçka sulandırma tamponu (>15 dakika)
- Bir fırın kabı, bir adet 3D baskılı cımbız tutucu (Ek Dosyalar 1–3), 10 cm genişliğinde 25–35 cm genişliğinde kendiliğinden kapalı film şeridi, 30,4 cm genişliğinde alüminyum folyo, buz ve kağıt havlular toplayın. Malzemeleri kriyo-pistonun yakınına yerleştirin (Şekil 3).
- Fırın kabını boyuna doğru, kriyo-pistonun yanına yerleştirin. Kabı yarı buzla doldurun, sonra üzerine kağıt havlularla örtün. Kağıt havluları musluk suyla hafifçe ıslatın.
- Kendi kendine sızdıran film şeridini, fırın kabının uzak yarısına doğru, ıslak kağıt havluların üzerine uzununa yerleştirin.
- 3D baskılı cımbız tutucusunu fırın kabının ortasına, doğrudan ıslak kağıt havluların ve kendi kendine sızdırmayan filmin üzerine uzunlamasına yerleştirin.
- Fırın kabını alüminyum folyo ile kapla örtün (Şekil 3).
- Deney boyunca erimiş buzu değiştirin.
- Kısmalı lipid ızgaralarını, kendiliğinden sızdıran filmin üzerine tezgah üstü nem odasında, lipid tarafı yukarıya bakacak şekilde yerleştirin (Şekil 3).
NOT: Tezgah üstü nem odasını hareket ettirmekten veya pipet ucuyla lipid ızgaralarına dokunmaktan kaçının, çünkü bu işlemler ızgaraları yerinden çıkarabilir. Eğer ızgaralar zarar görmemişse, kendini kapalayan filme düşen ızgaraları geri alın. - Her lipid yüzeyine 2 μL örnek seyreltme tamponu uygulayın. Buharlaşmayı en aza indirmek için odayı folyo ile kaplayın.
- Her lipid ızgarasının hidratasyonunu korumak için ızgarada 1 μl'den az sıvı kaldığında ek 2 μL seyreltme tamponu uygulanır.
- Hidratlanmış lipid ızgaralarını soğutma tezgahı nem odasında en az 15 dakika dengeleyin.
13. Numunenin lipid ızgaralarında kuluçka aşaması (>15 dakika)
- Lipid ızgaralarının en az 15 dakika boyunca sürekli olarak sulandırma tamponu ile nemlendirildiğinden emin olun.
- Stok seyreltme tamponunun tamamen soğutulduğundan emin olun.
- Her hidratlı lipid ızgarasına 3 μL polihistidin etiketli örnek uygulayın. Buharlaşmayı en aza indirmek için odayı folyo ile kaplayın.
- Izgara üzerinde 2 μl'den az sıvı kaldığında ek 2 μL seyreltme tamponu uygulayarak her lipid ızgarasının hidrasyonunu koruyun.
- Izgaraları en az 15 dakika kuluçka altına alın.
14. Kryo-piston tenceresinin hazırlanması (>15 dk)
- Kryo-piston potesini, pirinç bardağın dolaylı soğutması için kullanılan milin dahil olduğu bir yere monte edin.
- Kriyo-ızgara kutularını etiketleyin ve onları kriyo-piston kapsının içine yerleştirin.
- Cryo-plunger tenceresini LN2 ile doldurun. Buz kirliliğini en aza indirmek için tencereyi kapatın.
- LN2 seviyesini kriyo-grid kutularının üzerinde tutarak, periyodik olarak ek LN2 ekleyin.
- Metal bileşenleri ve kriyo-ızgara kutularını en az 10 dakika LN2 sıcaklığına soğutun.
DIKKAT: Sıvı propan ve etan, LN2'ye benzer yaralanmalara neden olan ancak belirgin bir Leidenfrost etkisi olmayan son derece yanıcı kriyojenlerdir. Sonuç olarak, temas anında ve kalıcı yaralanmalara yol açabilir. Kullanım sırasında sıçramaktan kaçının. Eğer propan-etan LN2'yi kirletiyorsa, kirlenmiş LN2'yi sıvı propan ve etan gibi yüksek önlemlerle ele alın. Kullanımdan sonra, kriyojenlerin güvenli bir şekilde buharlaşmasını sağlamak için kriyo-piston kapsesi'ni kimyasal bir buhar davlumbazına yerleştirin. - Pirinç bardağı 60:40 oranında sıvı propan-etan karışımıyla doldurun.
- Propan-etan karışımını en az 5 dakika boyunca LN2 sıcaklığında dengeleyin.
15. Lipid ızgaralarını dondurma (~1 saat)
- Leke kağıdının en az 1 saat boyunca 4 °C ve %100 nemde dengede olduğundan emin olun.
- Lipid ızgaralarının polihistidin etiketli örnekle en az 15 dakika kuluçka geçirdiğinden emin olun.
- Propan-etan sıcaklığının −190 °C'nin altında olduğunu doğrulayın, ardından mil çıkarın.
- Üç damla 50 μL seyreltme tamponu bir hat halinde, güvenli 10 cm2 kendiliğinden sızdıran bir parça üzerine dağıtın (Şekil 3).
- Her seyreltme tamponu damlasına sıralı olarak lipid yüzeyine dokunarak ve son damlada ızgarası serbest bırakarak bir kelepçeli lipid ızgarasını yıkayın.
- Yüzen lipid ızgarasını almak için kriyo-piston cımbızlarını kullanın. Şebekayı kriyo-pistona takın.
- Kullanılan tampon damlalarını tüy içermeyen bir doku ile emin ve atın.
- Propan-etan karışımına dondurmadan önce lipid ızgarasına aşağıdaki kriyo-piston ayarlarını uygulayın: bekleme süresi, 0 saniye; total blot, 1; blot kuvveti, −10; Blot süresi, 4 saniye; ve boşaltma süresi, 0 saniye.
- Kriyo-ızgarayı, propan-etan kabından bir kriyo-ızgara kutusundaki boş bir yuvaya aktarın.
- Tüm lipid ızgaraları için daldırma dondurma prosedürünü tekrarlayın.
Sonuçlar
Bu protokolün beklenen sonuçlarını göstermek için bir dizi deney gerçekleştirildi. %20 Ni-NTA lipid monokatmanlı ve içermeyen Holey-karbon R1.2/1.3 TEM ızgaraları, numuneyle birlikte daldırılmış dondurulmuş ve 200 keV kriyo-TEM kullanılarak görüntülenmiştir. Her koşul için 3–9 ızgara karesi görüntülendi. Buz kalınlığı, bireysel ızgaralar ve ızgara kareleri arasında değişirdi; optimal bölgelerde ince camlı buz ve iyi gömülü parçacıklar bulunur; bu, hızlı Fourier dönüşümünde (FFT)31 karakteristik Thon halkalarıyla doğrulanmıştır.
İlk deneyde, saflaştırılmış polihistidin etiketli Staphylococcus aureus glutamat sendazı (saGS) kullanılarak %20 Ni-NTA lipid monotabakalı afinite ızgaralarının optimal hazırlanması ve beklenen performansı gösterilmiştir (Şekil 6). Lipid monolayerlar altın örgülü TEM ızgaralarına aktarıldı. Lipid ızgaraları kurutulup 1 hafta boyunca kurutucuda saklandı, ardından rehidrasyon yapıldı. Tam rehidrasyondan sonra, 0.1 mg/mL saGS ızgaralarda 15–30 dakika kuluçka içinde inkubasyon yapılarak parçacık bağlanmasına izin verildi. SaGS parçacıkları, mikrograf başına ortalama 274 parçacık sayısı (N = 7) olan bu parçacıklar, lipid monolayer boyunca eşit dağılımda, minimum veya hiç örtüşmeden görünüyordu.
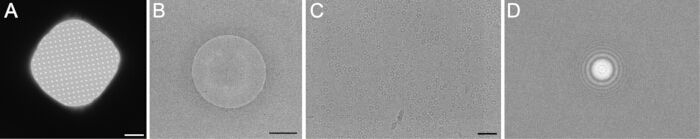
Şekil 6: %20 Ni-NTA lipid affinite ızgarasının temsil kriyo-TEM görüntüleri. Lipid monotabakası 1 hafta boyunca kurutuldu ve protokolde tarif edildiği gibi düşük tuzlu tampon ile yeniden nemlendirildi. Temsil edici görüntüler düşük (A), orta (B) ve yüksek (C) büyütmede toplanmış, karşılık gelen FFT (D)'de gösterilmiştir. Mikrograf başına ortalama 274 parçacık (N = 7) olan parçacıklar, ince camlı buz tabakası içinde ızgara yüzeyinde eşit şekilde dağılır. Ölçek çubukları: 10 μm, 500 nm ve 50 nm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
İkinci deneyde, parçacık yığımı gösteren saGS örnekleri lipid ızgaralarının protein toplama üzerindeki etkilerini göstermek için kullanılmıştır (Şekil 7). Dört kriyo-ızgara durumu incelendi: lipid içermeyen bakır ağ ızgaralarda saGS 1.0 mg/mL, lipidsiz bakır ağ ızgaralarda 0.1 mg/mL, hiç kurutulmayan lipidli altın örgülü ızgaralarda saGS 0.1 mg/mL ve saGS 0.1 mg/mL ile lipid ile 1 hafta boyunca sıvılaştırılmış altın örgülü ızgaralarda saGS. Lipid ızgaraları, mikrograf başına ortalama 40 veya 46 parçacık (N = 12) olan parçacık yoğunluğu göstermiştir; aynı protein konsantrasyonunda hazırlanan lipid olmayan ızgaralara kıyasla mikrograf başına ortalama 2 parçacık (N = 12) olurdu. Bu bulgular, değiştirilmemiş TEM ızgaralarına kıyasla net bir konsantrasyon etkisi gösterdi ve %20 Ni-NTA lipid monotabakasının sağlam kaldığını doğruladı. Parçacık yığımı hâlâ gözlemleniyor olsa da, lipid ızgaralarındaki parçacıklar minimum örtüşme gösterdi ve benzer odak düzlemi içinde kaldılar. Buna karşılık, lipid olmayan ızgaralardaki parçacıklar oldukça farklı odak derinliklerinde ortaya çıktı; toplanmış parçacıklar ise 1 mg/mL gibi daha yüksek konsantrasyonda gözlemlendi.
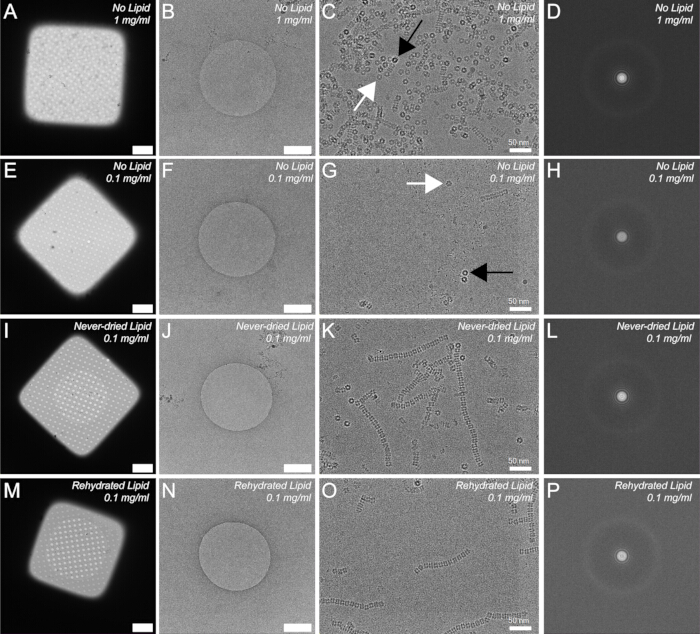
Şekil 7: %20 Ni-NTA lipid ve lipid olmayan ızgaralarda üst üste yığılmış polihistidin etiketli saGS'in kriyo-TEM görüntüleri. (A–D) SaGS ile 1.0 mg/mL ile hazırlanmış lipid dışı ızgara, düşük (A), orta (B) ve yüksek (C) büyütmede gösterilir ve karşılık gelen FFT (D) ile gösterilir. (E–H) 0.1 mg/mL seviyesinde saGS ile hazırlanmış lipid olmayan ızgara. (I–L) Hiç kurutmayan lipid ızgara, 0.1 mg/mL ile hazırlanmış saGS.
(M–P) 0.1 mg/mL ile saGS ile hazırlanmış yeniden hidretlenmiş lipid ızgarası. Lipid olmayan ızgaralarda parçacık yoğunluğu, ilgili lipid affinite ızgaralarında gözlemlenenden daha düşüktü; mikrograf başına ortalama 2 parçacık ile mikrograf başına 46 ve 47 parçacık (N = 12) bulunuyordu. Siyah oklar ise yoğun şekilde odaklanmamış parçacıkları gösterir. Beyaz oklar, odak yakınındaki parçacıkları gösterir. Ölçek çubukları: 10 μm, 500 nm ve 50 nm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Üçüncü deneyde, lipid ızgaraları N-dodesil-β-D-maltozid (DDM) ile maruz kaldı. Örnek olarak 0.1 mg/mL saflaştırılmış saGS kullanıldı. Deterjan lipid monolayer'ı bozdu. Tamponda %0,05 DDM içeren lipid kriyo-ızgaralarında (Şekil 8) lipid monokatmanında boşluklar, ızgara yüzeyinde lipid miselleri ve kontrol koşullarına göre parçacık yoğunluğu azalmıştır.
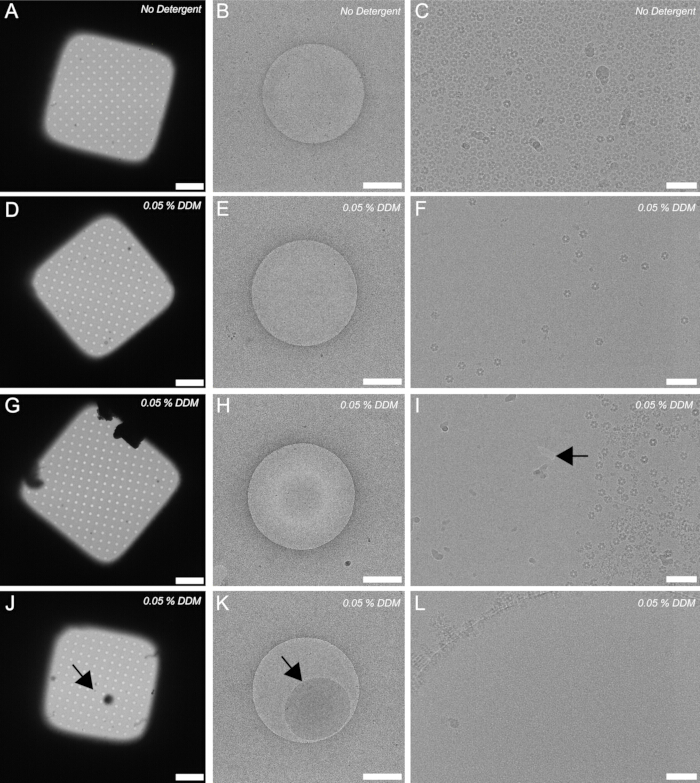
Şekil 8: %0,05 N-dodesil-β-D-maltozid (DDM) maruz kalan %20 Ni-NTA lipid ızgaralarının temsil görüntüleri. Kriyo-ızgaralar düşük, orta ve yüksek büyütmede görüntülendi. (A–C) %20 Ni-NTA lipid affinite ızgarasının örnek seyreltme tamponu ile yeniden hidretlenmiş görüntüleri. (D–L) %0,05 DDM içeren örnek seyreltme tamponu ile yeniden nemlendirilmiş %20 Ni-NTA lipid affinite ızgarasının görüntüleri. saGS partikül yoğunluğu, deterjanla işlenmiş TEM ızgaralarında daha düşüktü. Panel I'deki ok, lipid monokatmanında bir delik olduğunu gösterir. J ve K panellerindeki oklar aynı lipid miselini gösterir. Ölçek çubukları: 10 μm, 500 nm ve 50 nm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Buz kalınlığı hem ızgaralar arasında hem de bireysel ızgara kareleri içinde değişiklik göstermektedir. Bazı durumlarda, buz çok ince veya ızgara karesindeki bazı bölümlerde yoktu (Şekil 9A), eşit olmayan dağılım (Şekil 9B) veya görüntüleme için aşırı kalındı (Şekil 9C). Bazı bölgelerde buz kalınlığı, protein kompleksinin çapından daha küçüktü. Kuru alanlar veya çok ince buz içeren bölgeler, parçacık çapından ince olarak tanımlanan, veri toplama sırasında kaçınılmalıdır çünkü bu bölgelerdeki proteinler muhtemelen denatüre olmuştur. Bu protokolü kullanan deneyimlere dayanarak, kriyo-ızgaraların yaklaşık %25–%50'si, birden fazla ızgara karesi boyunca SPA veri toplamaya uygun yeterince ince buz içermesi beklenmektedir. Buz kalınlığı, bulaşma süresini ayarlayarak veya batma dondurmadan önce ızgaradaki son tampon hacmini değiştirerek optimize edilebilir.
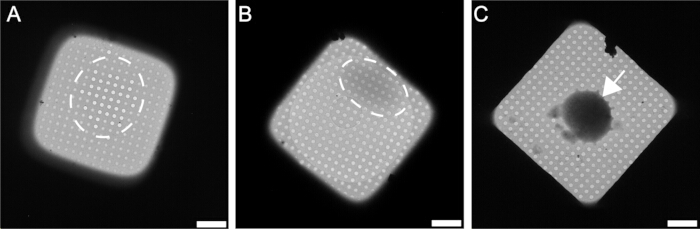
Şekil 9: Ni-NTA affinite ızgaralarının düşük optimal örnekleri. %20 Ni-NTA affinitesi kriyo-ızgaralarının temsil eden kriyo-TEM mikrografları. (A) Grid karesinin ortasında olmayan lipid filmi, boş delikleri çevreleyen beyaz kesik daire ile gösterilir. (B) Düzensiz buz içeren ızgara kare, beyaz kesik daire ile gösterilen bölgeye yakın daha kalın buz içerir. (C) Görüntülenemeyecek kadar kalın buz içeren ızgara karesi, ok ile gösterilir. Ölçek çubukları: 10 μm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Doğru hazırlandığında, affinite ızgaraları ağırlıklı olarak tek tabakalı parçacıkların film üzerine adsorbe edildiği bir lipid monotabakası içerir. Parçacık yoğunluğunun, benzer örnek konsantrasyonları kullanılarak hazırlanan lipid olmayan ızgaralarda gözlemlenenin üzerinde olması beklenmektedir. Lipid monotabakasının TEM ızgarasına aktarılmaması, ya boş delikler (Şekil 10A) ya da lipid filmi içermeyen ve az veya hiç parçacık göstermeyen vitreus buz içeren delikler içeren kriyo-ızgaralar ortaya çıkar (Şekil 10B, C).
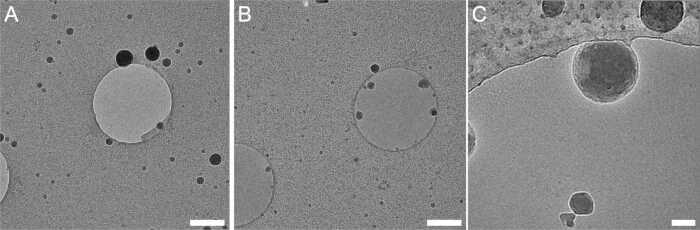
Şekil 10: Lipid monolayer içermeyen bir TEM ızgara örneği. Lipid monolayer'ın TEM ızgara yüzeyine başarısız transferini gösteren kriyo-TEM görüntüleri. Polihistidin etiketli insan nükleozomları karbon filmine adsorbe edilir. (A) Boş deliklerin bulunduğu ızgara karesindeki bölge. (B) Aynı ızgaranın cam buzuyla dolu delikler içeren ancak görünür parçacıklar veya lipid filmi olmayan farklı bölgeler. (C) Lipid filmi içermeyen ancak cam buzu içeren bir deliğin yüksek büyütme görüntüsü; kalın karbon destek filminde parçacıklar görünür. Ölçek çubukları: 1 μm ve 50 nm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
Ek Dosya 1: Cizre tutucusunun 3D baskısı için talimatlar. Bu ek dosya, lipid ızgara hidrasyonu ve örnek kuluçka sırasında kullanılan özel cımbız tutucularının 3D baskısı için ayrıntılı talimatlar içerir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 2: 3D baskı tezgah üstü cımbız tutucu için STL dosyası. Bu ek dosya, 3D baskı için gereken stereolitografi (STL) dosyasını içerir; cımbız tutucu versiyonu ve bir tezgah üstü nem odasında inkubasyon için kullanılan cımbız tutucu versiyonu (Şekil 3C, 3D). Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 3: 3D baskı kriyo-piston cımbız tutucu için STL dosyası. Bu ek dosya, kriyo-piston nem odasında hidratlı lipid ızgaralarının kuluçka aşamasında kullanılan cımbız tutucu versiyonunun 3D baskısı için gereken stereolitografi (STL) dosyasını içerir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu çalışma, Ni-NTA lipid monotabakalı afinite ızgaralarının hazırlanması için ayrıntılı adım adım bir protokol sunar ve çözünür polihistidin etiketli protein komplekslerinin rutin kriyo-EM yapısal belirlenmesi için bu yaklaşımın önemli pratik değerlendirmelerini ve avantajlarını vurgular. Protokoldeki birkaç adım teknik olarak zordur ve özellikle ilk kez kullananlar için kullanıcı hatasına açıktır.
Lipid monolayer modifikasyonu yaklaşık 2 saat içinde tamamlanabilir ve ortaya çıkan lipid ızgaraları daha sonra kullanmak üzere kurutulup depolanabilir. Ek 2 saat ve bir kriyo-pistona erişimle, kriyo-ızgaralar hazırlanabilir. Bu nedenle, bu yöntem çok kullanıcılı tesisler ve kriyo-EM laboratuvarları için oldukça uygundur. Bu yaklaşımla, çözünür protein komplekslerinin yapıları 97 ila 470 kDa arasında 3 altındaki şçözünürlük17'de belirlenmiştir. Ni-NTA lipid monotabakasına verimli bağlanma, esnek bir linker içeren polihistidin etiketli bir bileşen gerektirir. Nukleozomlar ve glutamat sentazlar dahil olmak üzere belirli örneklerde monotabakaya göre bir derecede tercih edilen yönelim gözlemlenmiş olsa da, bu yönelimler çözünürlüğü sınırlamadı veya nihai rekonstrüksiyonlara esnetme artefaktları getirmedi. Ni-NTA lipid monotabakası ile polihistidin etiketli proteinler arasındaki etkileşim, TEM ızgara yüzeyinde verimli parçacık yakalamayı teşvik eder. Sonuç olarak, yapısal analiz, ek örnek hazırlama adımları olmadan nispeten seyreltilmiş örnekler ve RELION ile cryoSPARC gibi standart kriyo-EM işleme boru hatları kullanılarak yapılabilir.
TEM ızgaralarının dikkatli kullanımı ve lipid karışımlarının hazırlanması tekrarlanabilir sonuçlar için gereklidir. Lipid monokatmanlar, kalıntı deterjanlar, yağlar ve toz dahil kirleticilere karşı son derece hassastır. Bu nedenle tüm cam eşyalarının titiz temizlenmesi kritik öneme sahiptir. Anyonik yüzeyaktif maddeyle yıkama, ardından ultra saf suyla kapsamlı bir durulama ve iyice hava kurutma, ardından hemen kullanımdan önce kloroform ve etanol ile durulama şiddetle tavsiye edilir.
Protokol, geniş bir örnek ve tampon koşulları yelpazesinde tepkisiz olan altın örgülü TEM ızgaraları kullanır. Farklı örnekleri barındırmak için, lipid döküm, lipid ızgara rehidrasyonu, numune kuluçkası ve daldırma dondurmadan önce yıkama sırasında kullanılan tamponlar gerektiğinde değiştirilebilir. Gliserol veya diğer katkı maddeleri içeren numune tamponları, vitrifikasyondan önce yıkama aşamasında çıkarılabilir. Ditiothreitol (DTT) içeren tamponlardan kaçınılmalıdır çünkü DTT nikel32'yi azaltır ve polihistidin etiketli proteinler ile Ni-NTA lipid monolayer arasındaki bağlanmayı engeller. Deterjan da önerilmez çünkü %0,05 N-dodesil-β-D-maltozid (DDM) lipid monotabakasını bozdu ve membran-protein yapısal çalışmalarında yaygın olarak kullanılan diğer deterjanların benzer etkiler yaratması beklenmektedir (Şekil 8D–L). Daha düşük deterjan konsantrasyonlarının mı yoksa düşük kritik misel-konsantrasyonlu deterjanların da tek katmanlı bütünlüğü bozup bozulmayacağı henüz belirlenmemiştir.
Protokolün en teknik olarak zorlayıcı kısmı, lipid monolayer'ı TEM ızgarasına dökmek ve aktarmaktır. Bu adım, sıcaklık, titreşim ve kullanım tekniğine karşı son derece hassastır. En iyi sonuçlar, lipid filmlerinin oda sıcaklığında (~22 °C) önceden soğutulmuş tampon kullanılarak dökülmesiyle elde edildi. Mekanik bozulmalar en aza indirilmelidir çünkü titreşimler tek katmanı dengesizleştirebilir. Buna göre, petri kabı lipid dökümden sonra sabit kalmalıdır. Transfer sırasında, hint yağı ve lipid monotabakası tampon yüzeyi boyunca yavaş yavaş hareket edebilir ve bu da lipid monotabakası yerine hint yağının aktarma olasılığını artırır (Şekil 5C). Petri kabının doğru doldurulması ve ızgara yönünün dikkatli kontrolü, tam ve tekdüze bir katmanlı transferi sağlamak için gereklidir. Lipid filminin TEM ızgara yüzeyine aktarılmaması, hidrofobik bir ızgara yüzeyi oluşturur ve tamponun karbon yüzeyine boncuk yapışmasına neden olur.
Bu çalışmada, yalnızca iki taraflı blotlama kullanan bir kriyo-piston değerlendirildi. Ancak, manuel veya tek taraflı blotlama gibi diğer blotlama yöntemlerinin, lipid filmi zarar görmediği sürece benzer sonuçlar vermesi beklenmektedir. Bu protokol uyarlanırken, lipid ızgaraları standart TEM ızgaralarına benzer şekilde ele alınmalı ve birkaç önemli hususla değerlendirilmelidir. Plazma temizliğinden kaçınmalı ve lipid ızgaraları numune uygulamadan önce en az 15 dakika boyunca sürekli nemlendirilmelidir. Numuneler, yüzey adsorpsiyonu için lipid ızgarasında en az 15 dakika kuluçka edilmeli ve ızgara, son tampon hacminin normalleşmesi için blotlamadan önce en az bir damla seyreltme tamponu ile temas edilmelidir. Ni-NTA lipid monotabakasının örnek kuluçka boyunca hidratasyonunu sürdürmek kritik öneme sahiptir, çünkü buharlaşma yerel tuz konsantrasyonlarını artırabilir ve potansiyel olarak protein yapısını veya karmaşık montajı değiştirebilir. Daha uzun kuluçka süreleri (>30 dakika) ızgaradaki parçacık yoğunluğunu artırabilir, ancak uzun süreli kuluçka potansiyel örnek bozulmasına karşı dengelenmelidir. Bu protokolte tanımlanan 60:40 sıvı propan-etan karışımı önerilir ancak kesinlikle zorunlu değildir. Alternatif propan-etan oranları veya saf etan, etan kupası ısıtma sistemiyle donatılmış bir kriyo-piston ile birlikte kullanılarak deney boyunca kriyojenin sıvı halde kalması sağlanabilir. Son olarak, parçacık dağılımı buz kalınlığından etkilenir. Bazı durumlarda, özellikle ızgara karelerinin merkezine yakın bölgelerde parçacıklar çok ince buz içeren bölgelerden dışlanabilir. Bu nedenle, her vitrifikasyon cihazı için lekelenme koşullarının optimize edilmesi gerekebilir. Genel olarak, Ni-NTA lipid monotabakalı afinite ızgaraları, çözünür polihistidin etiketli protein komplekslerinin yapısal belirlenmesi için sağlam ve erişilebilir bir strateji sunar. Burada tanımlanan adım adım prosedürün dikkatli uygulanmasıyla, bu yöntem standart kriyo-EM iş akışlarına kolayca entegre edilebilir.
Teşekkürler
Yazarlar, bu deneylerde kullanılan tamponları sağlayan North Carolina Üniversitesi'nden Caleb Fisher, Rob McGinty, Nicholas Wright, Blake Fordyce ve Bryan Roth'a teşekkür ediyor. UNC-Chapel Hill KriyoEM Çekirdek Tesisi ve UNC Çekirdek Tesis Savunuculuk Komitesi teknik ve finansal destek için takdir edilmektedir. Kaliforniya Üniversitesi, Santa Cruz Kimya ve Biyokimya Bölümü'ndeki Biyomoleküler Kriyo-Elektron Mikroskopi Tesisi (RRID: SCR_021755) teknik desteği nedeniyle takdir edilmektedir. Bu çalışma, Ulusal Sağlık Enstitüleri'nin Ulusal Kanser Enstitüsü tarafından P30CA016086 numaralı ödül altında ve Ulusal Sağlık Enstitüleri'nden Richard W. Baker'a verilen R35GM150960 hibe ile desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1 mL volumetric flask with stopper | Avantor | 10124-382 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 1 mL |
| 2.5 µL glass syringe | Hamilton | 7632-01 | 2.5 Microliter Syringe, removable needle (RN), no needle included |
| 3.7 mL threaded glass vial with phenolic cap | Fisher Scientific | 03338A | Fisherbrand Class B clear glass threaded vial with attached closure, 3.7 mL |
| 4-slot cryo-grid box | MiTeGen | 71166-10 | Cryo Grid Box Round With Lid |
| 11.4 L plastic tub | Sterilite 12 qt dishpan, multi-purpose plastic wash tub | ||
| 25 µL glass syringe | Hamilton | 80430 | 25 Microliter Syringe, removable needle (RN), includes 22s gauge, 52 mm curved beveled needle |
| 25 mL volumetric flask with stopper | Avantor | 10123-994 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 25 mL |
| 99.5% pure ethanol | Thermo Fisher Scientific | 615090040 | Ethanol, 99.5%, ACS reagent, absolute, 200 proof |
| 99.8% pure chloroform | Fisher Scientific | AA32614K2 | Chloroform, ACS, 99.8+% |
| Aluminum foil | Walmart | Aluminum foil, 30.4 cm width | |
| Anionic surfactant powder | Fisher Scientific | 50-997-492 | Electron Microscopy Sciences Alconox anionic powder detergent, 4 lb |
| Baking dish | Walmart | Pyrex 232-D 3-quart deep glass baking dish | |
| Blot paper | Ted Pella | 47000-100 | Standard Vitrobot filter paper, Ø55/20 mm, Grade 595 |
| Bottle of castor oil with dropper | Walmart | Organic castor oil with dropper, 1 fl oz | |
| Cryo-plunger | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | 18:1 (Δ9-Cis) PC (DOPC), 1,2-dioleoyl-sn-glycero-3-phosphocholine powder, 25 mg |
| Fine-tip tweezers | Ted Pella | 505 | DUMONT Biology Grade Tweezers, style 5, polished stainless steel |
| Glass culture tube | Fisher Scientific | 14958A | Fisherbrand disposable flint glass tube with plain end, 1 mL |
| Glass pipet | Fisher Scientific | 13-678-20A | Fisherbrand disposable borosilicate glass Pasteur pipet, 14.6 cm |
| Gold-mesh holey-carbon TEM grid | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 mesh |
| Grade 1 filter paper | Sigma-Aldrich | WHA1001150 | Whatman qualitative filter paper, Grade 1, 150 mm diameter |
| Large petri dish with cover | Fisher Scientific | 08747E | Corning PYREX reusable petri dish with cover, 150 mm diameter, 15 mm height |
| Low-lint tissues | Fisher Scientific | 06-666 | Kimtech Science Kimwipes delicate task wipers, 1-ply |
| Ni-NTA lipid | Avanti Polar Lipids | 790404P-5mg | 18:1 DGS-NTA(Ni), 1,2-dioleoyl-sn-glycero-3-[(N-(5-amino-1-carboxypentyl)iminodiacetic acid)succinyl] (nickel salt) |
| Pipet bulb | Fisher Scientific | S32325 | Fisherbrand rubber bulb, natural, 2 mL |
| Reagent ethanol | Sigma-Aldrich | 362808-1L | Reagent alcohol ≥89% (GC), contains 5% isopropyl alcohol and 5% methyl alcohol |
| Self-closing anti-capillary tweezers | Ted Pella | 510-5 | DUMONT anti-capillary reverse tweezers, Biology Grade, style 5ACN, stainless steel |
| Self-sealing film | Fisher Scientific | S47529 | Parafilm M wrapping film, 10 cm |
| Small petri dish with cover | Fisher Scientific | 08747A | Corning PYREX reusable petri dish with cover, 60 mm diameter, 15 mm height |
| Syringe needle | Hamilton | 7803-01 | 27 gauge small-hub removable needle (RN), beveled, 75 mm length, 45° angle |
Kaynaklar
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında