LC3 immünobloting, otofajiyi izlemek için yaygın olarak kullanılan bir yöntemdir ancak dikkatli optimizasyon gerektirir. Bu protokol, Fiji kullanılarak yapılan densitometrik analiz için standartlaştırılmış bir iş akışı ve temel teknik hususları içeren, KPC kaynaklı pankreas kanseri hücrelerinde LC3-II saptaması ve kantifikasyonu için sağlam bir yaklaşımı tanımlamaktadır.
Yöntem makalesi
Fare Kaynaklı Pankreas Kanseri Hücrelerinde Otofagozomal Dinamikleri İzlemek İçin Mikrotübül İlişkili Protein Hafif Zincir 3'ün Western Blot Analizi
Bu makalede
Özet
Özet
Otofaji, tümör ilerlemesine, stres adaptasyonuna ve tedaviye karşı direnç gelişimine katkıda bulunarak pankreatik duktal adenokarsinomda (PDAC) karmaşık bir rol oynar. Bu nedenle, otofagozomal dinamiklerin doğru değerlendirilmesi, kanser biyolojisi çalışmaları için esastır. Mevcut yöntemler arasında, mikrotübül ilişkili protein hafif zincir 3'ün (LC3) immünoblotlanması,le sitozolik (LC3-I) ve lipitlenmiş, otofagozomla ilişkili (LC3-II) formlar arasında ayrım yaparak otofagozomal dinamikleri izlemek için yaygın olarak kullanılmaktadır. Ancak, LC3'ün düşük moleküler ağırlığı ve bu izoformlar arasındaki elektroforetik mobilite farkının çok az olması, dikkatli optimizasyon gerektiren teknik zorluklar teşkil etmektedir. Burada, KPC kaynaklı fare pankreas kanseri hücrelerinde LC3-II seviyelerinin Western blot ile yarı nicel analizi için tekrarlanabilir bir protokol sunulmaktadır. Yöntem, LC3 izoformlarının güvenilir şekilde ayrılmasını ve tespitini sağlamak için hücre lizisi, elektroforez, protein transferi ve antikor tabanlı tespit için optimize edilmiş koşulları içermektedir. Ek olarak, Fiji (ImageJ) kullanılarak LC3-II bantlarının densitometrik analizi için standartlaştırılmış bir iş akışı sağlanmıştır. Yöntemin hassasiyeti, otofaji indüksiyonu (gemcitabine tedavisi) ve bozulmuş otofajik akış (VMP1 knockdown) koşulları altında artan LC3-II seviyelerinin tespiti ile gösterilmiştir. Lizis tamponu bileşimi ve antikor özgüllüğü dahil olmak üzere veri yorumlamasını etkileyen kritik teknik parametreler, yaygın deneysel hatalarla birlikte incelenmiştir. LC3 immünoblotlaması tek başına otofajik akışı tam olarak tanımlamak için yetersiz olsa da, tamamlayıcı analizlerle birleştirildiğinde otofajik aktiviteyi izlemek için sağlam ve erişilebilir bir yaklaşım sunar. Protokol, diğer deneysel bağlamlara uyarlanabilir ve böylece kanser modellerinde otofajinin mekanistik çalışmalarını kolaylaştırabilir.
Giriş
Makrooto faji (bundan böyle otofaji olarak anılacaktır), hücrelerin proteinler ve disfonksiyonel organeller dahil olmak üzere sitoplazmik materyalleri parçaladığı düzenlenmiş bir yıkım yoludur. Otofajinin karakteristik özelliği, hücresel kargoyu içine alan ve ardından yıkım için lizozomlara ileten, otofagozom olarak bilinen çift membranlı bir yapının oluşmasıdır1,2,3. Normal hücrelerde otofaji, proteinlerin ve organellerin kontrollü döngüsüne katkıda bulunarak oksidatif stresi sınırlar ve tümör gelişimi riskini azaltır. Ancak kanser hücrelerinde bu süreç, yüksek metabolik talep, besin eksikliği ve hipoksi koşulları altında sağkalımı desteklemek için kullanılabilir. Otofaji, düşman bir mikroortama adaptasyonu kolaylaştırarak, kısmen tedavi kaynaklı hücresel hasarı hafifleterek kemoterapi direncine de katkıda bulunur4,5.
Pankreas kanseri, Amerika Birleşik Devletleri'nde kansere bağlı ölümlerin üçüncü önde gelen nedeni olarak sıralanmaktadır. Pankreas kanserlerinin yaklaşık %90'ı pankreatik duktal adenokarsinom (PDAC) olarak sınıflandırılır. Erken teşhis ve terapötik gelişmelerin hasta sağkalımını artırdığı diğer birçok malignite ile 달리, PDAC vakaların %80'inden fazlasında ileri evrede teşhis edilir. Agresif tümör biyolojisi ve tedaviye karşı belirgin direnç ile birleşen bu geç evre sunumu, yaklaşık %11'lik bir 5 yıllık genel sağkalım oranı ile sonuçlanmaktadır6.
Onkogenik Kras'ın pankreasa özgü aktivasyonuna ve Cre rekombinaz tarafından yönlendirilen Trp53'ün koşullu delesyonuna dayanan KPC fare modeli, pankreatik duktal adenokarsinomun en yaygın kullanılan genetik olarak modifiye edilmiş modellerinden biridir. Bu farelerde, pankreatik intraepitelyal neoplazi (PanIN) aşamasından invaziv karsinoma ilerleyen ve insan hastalığına yakından benzeyen tümörler kendiliğinden gelişir. Önemli olan şudur ki; bu model, yoğun desmoplastik stroma ve immünosupresif bir tümör mikroçevresi dahil olmak üzere pankreas kanserinin temel özelliklerini yeniden sergilemektedir. KPC farelerinden izole edilen tümör hücreleri (KPC türevli hücreler), orijinal tümörlerin birçok genetik ve fenotipik özelliğini koruyan tamamlayıcı bir in vitro sistem sağlayarak mekanistik çalışmalara ve terapötik yanıtların kontrollü değerlendirmesine olanak tanır7,8.
VMP1, Beclin-1 ile etkileşime girerek ve PI3KC3 kompleksini çağırarak otofajiyi başlatan temel bir otofaji ilişkili proteindir9,10. Başlatma aşamasının ötesinde VMP1; otofazozom oluşumu10, kapanma11 ve mitofaji12 ile zimofaji13 gibi seçici süreçler dahil olmak üzere otofajinin birden fazla aşamasında yer alır. VMP1, otofajik akış boyunca etkili olmaya devam eder ve bir fosfolipid skramblaz olarak ek fonksiyonlar sergileyebilir14. Pankreasta VMP1 ekspresyonu tipik olarak düşüktür; ancak pankreatit ve onkogenik transformasyon gibi stres koşulları altında güçlü bir şekilde indüklenir ve burada mutant KRAS sinyalleme yolunun aşağısında otofajiyi teşvik eder15,16. VMP1, pankreas kanserinde aşırı eksprese edilir17 ve deneysel fare modelleri, VMP1'e bağımlı otofajinin tümör başlangıcını ve PanIN oluşumunu teşvik etmek için KRAS ile iş birliği yaptığını göstermiştir18. Ayrıca VMP1, gemcitabine19 gibi ajanlar tarafından yukarı regüle edilmesinin otofajiyi stimüle etmesi19 ve tümör hücresi sağkalımını desteklemesi17 nedeniyle kemoterapi direncine katkıda bulunur ve bu da pro-tümörijenik rolünü vurgular15.
Otofagozomlar, otofaji ile ilişkili protein mikrotübül ilişkili protein hafif zincir 3 (LC3) varlığı ile karakterize edilir20. Bazal koşullar altında LC3, ağırlıklı olarak sitoplazma ve çekirdek boyunca dağılmış çözünür bir formda (LC3-I) bulunur. Otofajinin aktivasyonu üzerine LC3, fosfatidiletanolamine konjugasyon yoluyla lipidasyon geçirerek membranla ilişkili form olan LC3-II'yi oluşturur1,21. LC3-II, bu modifikasyon nedeniyle LC3-I'den daha yüksek bir moleküler ağırlığa sahip olsa da, muhtemelen artan hidrofobisitesi nedeniyle SDS-PAGE sırasında daha hızlı göç eder. Sonuç olarak, LC3-I'den LC3-II'ye dönüşüm, proteolitik işlemeden ziyade lipidasyonu yansıtır; LC3-I tipik olarak yaklaşık 16 kDa'da ve LC3-II yaklaşık 14 kDa'da tespit edilir. LC3-II seviyeleri otofagozom bolluğu ile korelasyon gösterdiğinden, otofajik aktiviteyi izlemek için LC3 immunoblotting yaygın olarak kullanılmaktadır22. Bu nedenle, LC3 dinamiklerinin doğru değerlendirilmesi, otofajiyle ilişkili deneysel bulguların yorumlanması için esastır.
Bu çalışma, KPC türevli bir pankreas kanseri hücre hattında klasik bir LC3 immunoblot protokolünün standardizasyonunu ve teknik optimizasyonunu detaylandırmaktadır. LC3 düşük molekül ağırlıklı bir protein olduğu, LC3-I ve LC3-II formları elektroforetik mobilite açısından yalnızca ~2 kDa kadar farklılık gösterdiği ve LC3-II lipitlenmiş bir tür olduğu için optimizasyon özellikle önemlidir21,22. Sonuç olarak, prosedürdeki küçük varyasyonlar LC3 tespitini tehlikeye atabilir ve suboptimal sonuçlara yol açabilir. Ayrıca, örneklerin tür kökeni, optimal immünoreaktivite elde etmek için önemli bir husustur. Optimize edilen protokol, sırasıyla otofajiyi stimüle ettiği ve otofajik akışı bozduğu bilinen kemoterapötik ajan gemcitabine tedavisi ve VMP1 nakavt sonrası artan LC3-II seviyelerini tespit edebilecek kadar hassastır. Son olarak, veri kalitesi ve sonuç yorumlama üzerindeki etkilerini göstermek için iki potansiyel teknik hata vurgulanmıştır. Bu deneysel iş akışının genel bir özeti Şekil 1'de gösterilmiştir.
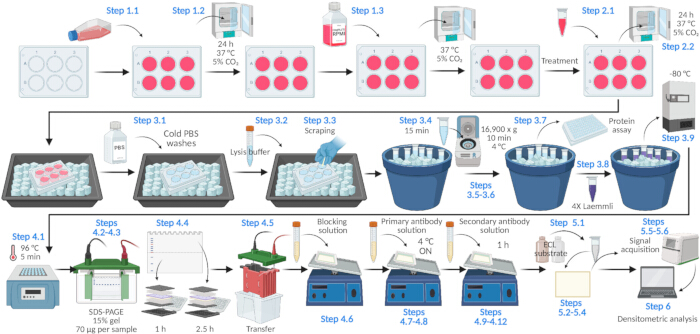
Şekil 1: KPC kaynaklı hücrelerde LC3 immunoblot protokolünün şematik gösterimi.Immunoblotting ile LC3-II seviyelerinin tespit edilmesi ve miktarının belirlenmesi için kullanılan protokolün şematik özeti. KPC kaynaklı pankreas kanseri hücreleri kültüre edilir ve deneysel işlemlere tabi tutulur; ardından hücre lizisi, protein kantifikasyonu, SDS–PAGE, membran transferi, antikor temelli LC3 tespiti, kemilüminesans sinyal alımı ve bir yükleme kontrolüne göre normalize edilmiş LC3-II bantlarının densitometrik analizi gerçekleştirilir. İş akışı, LC3 dinamiklerinin güvenilir değerlendirmesi için gerekli olan temel prosedürel adımları ve kritik aşamaları vurgulamaktadır. BioRender.com ile oluşturulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Protokol
Hayvanları içeren tüm prosedürler, kurum kılavuzlarına uygun olarak gerçekleştirilmiş ve Massachusetts General Hospital'ın Kurumsal Hayvan Bakım ve Kullanım Komitesi (IACUC) tarafından #2019N000111 numaralı protokol kapsamında onaylanmıştır. Bu çalışmada kullanılan KPC kaynaklı pankreas kanseri hücre hattı, daha önce bu onaylı protokol altında Mostoslavsky laboratuvarında oluşturulmuştur. Reaktiflerin, kimyasalların ve ekipman bilgilerinin listesi Materyaller Tablosu'nda sunulmuştur.
1. Hücre hazırlığı
- Düşük pasajlı KrasG12D; Trp53f/+; p48-Cre (bundan sonra KPC olarak anılacaktır) kaynaklı pankreas tümör hücrelerini, %10 fetal bovine serum, 100 U/mL penisilin ve 100 µg/mL streptomisin içeren Roswell Park Memorial Institute ortamında (RPMI 1640) 6 kuyucuklu bir plakada ekleyin. Liz gününde %70-90 konfluans elde etmek için ekim yoğunluğunu ayarlayın.
NOT: Kuyucuk başına 3,5 × 10⁵ hücrelik bir ekim yoğunluğu, 72 saat sonra yaklaşık %80 konfluans ile sonuçlanmıştır. Büyüme oranları laboratuvarlar ve KPC modelleri arasında farklılık gösterebileceğinden, deneyi gerçekleştirmeden önce optimal ekim yoğunluğunu ampirik olarak belirleyin.
NOT: Stabil VMP1-knockdown hücre hatları oluşturmak için, HEK293T hücrelerini paketleme plazmidleri ve ilgili lentiviral vektör ile polyethylenimine (PEI) kullanarak ko-transfekte edin ve lentiviral partiküller üretin. Lentiviral süpernatantları transfeksiyondan 72 saat sonra hasat edin, hücresel döküntüleri uzaklaştırmak için 4 °C'de 10 dakika boyunca 300 × g hızında santrifüjleyin ve 0,45 µm şırınga filtresinden süzün. KPC hücrelerini, hasat edilen viral süpernatantlarla tek tur transdüksiyona tabi tutun. Stabil olarak transdükte edilmiş hücreleri 72 saat boyunca 2,5 µg/mL puromisin (10 mg/mL stok çözeltiden 1:4.000 seyreltme) ile tedavi ederek seçin. - Hücreleri, %5 karbondioksit (CO₂) içeren nemlendirilmiş bir inkübatörde 37 °C'de kültüre edin.
- Ortamı taze ortamla değiştirin ve aynı koşullar altında inkübasyona devam edin.
2. 20 µM gemcitabine ile işlem yapılması
- Lizden bir gün önce RPMI ortamında 10 mM gemcitabine çözeltisi hazırlayın. 20 µM son konsantrasyona ulaşmak için her kuyucuğa 10 mM çözeltiden 4 µL uygulayın.
- Hücreleri %5 karbondioksit (CO₂) içeren nemlendirilmiş bir inkübatörde, 37 °C'de 24 sa boyunca inkübe edin.
3. Hücre lizatları
- Plakayı buz üzerine yerleştirin ve soğuk fosfat tamponlu tuzlu solüsyon (PBS; 137 mM NaCl, 2.7 mM KCl, 8 mM Na₂HPO₄ ve 2 mM KH₂PO₄) ile üç kez yıkayın.
- Proteaz inhibitörleri ile desteklenmiş 80 µL liziz tamponu (50 mM Tris-HCl, pH 8.0, 150 mM NaCl, %1 Triton X-100 ve %0.1 SDS) ekleyin.
NOT: Kuyucuklar arasında farklı konfluens seviyeleri gözlemlenirse, karşılaştırılabilir protein konsantrasyonları elde etmek için liziz tamponu hacmini ayarlayın. Kılavuz olarak, %10 konfluens başına ~10 µL liziz tamponu kullanın (örneğin, %70 konfluens için 70 µL ve %90 konfluens için 90 µL). - Bir P200 pipet ucunun geniş (proksimal) ucunu kullanarak, hücreleri ayırmak ve liziz tamponunda toplamak için her bir kuyucuğun tüm yüzeyini iyice kazıyın.
- Lizatı bir mikrosantrifüj tüpüne toplayın ve 15 dk boyunca buz üzerinde tutun.
- Numuneleri 4 °C'de, 10 dk boyunca 16,900 × g'de santrifüj edin.
- Süpernatantı temiz bir mikrosantrifüj tüpüne aktarın.
- Protein miktar tayini için bir alikot alın ve analiz edilene kadar buz üzerinde tutun.
NOT: Protein miktar tayini için, 2.5 µL lizatı 7.5 µL liziz tamponunda seyreltin ve 200 µL bisinkoninik asit reaktifi ile karıştırın. Alternatif protein miktar tayini yöntemleri de kullanılabilir. - Lizatlara 4× Laemmli örnek tamponu (250 mM Tris-HCl, pH 6.8, %8 SDS, %40 gliserol, %0.04 bromofenol mavisi ve %20 β-merkaptoetanol) ekleyin ve iyice karıştırın. 77.5 µL lizat için 25.8 µL Laemmli örnek tamponu ekleyin.
- Numuneleri −80 °C'de saklayın.
NOT: Protokol bu adımda duraklatılabilir. Numuneler, SDS–PAGE öncesinde iki haftaya kadar −80 °C'de saklanabilir.
4. SDS–PAGE ve Western blot
- Numuneleri 96 °C'de 5 dk ısıtın.
- Her numuneden 70 µg'ı %15'lik bir SDS-PAGE jeline (1,5 mm kalınlık) yükleyin ve boya önü ayırıcı jele girene kadar elektroforezi 90 V'da çalıştırın. %15 akrilamid/bis-akrilamid, 375 mM Tris-HCl (pH 8,8) ve %0,1 SDS içeren, kendi döküldüğü %15'lik poliakrilamid ayırıcı jel kullanın.
- Voltajı 120 V'a yükseltin ve boya önü jelin altına ulaşana veya jelin altından çıkana kadar elektroforeze devam edin. Moleküler ağırlık merdiveninin 10 kDa marker'ı jelden çıkmadan önce çalışmayı durdurun.
- Üst ve alt kısımları ayırmak için jeli yaklaşık 25 kDa'den kesin.
- Proteinleri, transfer tamponunda (25 mM Tris baz, 192 mM glisin ve %20 [v/v] metanol) metanol ile önceden aktive edilmiş 0,2 µm PVDF membrana; alt jel kısmı (<25 kDa) için 1 sa boyunca ve üst jel kısmı (>25 kDa) için 2,5 sa boyunca 200 mA'de aktarın.
- Membranı, hafif ajitasyon altında bloklama tamponunda 1 sa boyunca bloklayın.
- %0,1 Tween-20 içeren bloklama tamponunda 1:1.000 oranında anti-LC3 primer antikor çözeltisi hazırlayın.
NOT: Anti-LC3 primer antikor 1:1.000 dilüsyonda, anti-aktin yükleme kontrol antikoru ise 1:4.000 dilüsyonda kullanılmıştır. - Membranı, hafif ajitasyon altında anti-LC3 primer antikoru ile gece boyunca 4 °C'de inkübe edin.
- Membranı TBS-T (TBS içinde %0,1 Tween-20; 20 mM Tris-HCl, pH 7,6 ve 150 mM NaCl) ile 5 dk boyunca dört kez yıkayın.
- Bloklama tamponunda 1:2.000 oranında yabanoturu peroksidaz-konjuge anti-tavşan sekonder antikor çözeltisi hazırlayın.
- Membranı, sekonder antikor ile oda sıcaklığında hafif ajitasyon altında 1 sa boyunca inkübe edin.
- Membranı TBS-T ile 5 dk boyunca dört kez yıkayın.
- Membranı TBS ile iki kez yıkayın.
5. Kemilüminesans saptama
- Kullanımdan hemen önce, Reagent A (luminol/güçlendirici çözeltisi) ve Reagent B (peroksit çözeltisi) çözeltilerinden eşit hacimlerde karıştırarak iki bileşenli geliştirilmiş kemilüminesans substratı hazırlayın.
- Laboratuvar mendili kullanarak membrandaki fazla sıvıyı nazikçe kurulayın.
- Membranı opak bir kutuya yerleştirin.
- Geliştirilmiş kemilüminesans çözeltisini membranın üzerine ekleyin, kutuyu kapatın ve 5 dk boyunca inkübe edin.
- Fazla çözeltinin membrandan süzülmesini sağlayın ve sinyal tespiti için membranı görüntüleme sistemine yerleştirin.
- Görüntüleme sisteminin üretici talimatlarına göre görüntüleri elde edin.
6. Fiji kullanılarak densitometrik analiz
- Görüntü dosyasını açmak için dosyayı Fiji penceresine sürükleyip bırakın.
- Görüntüyü 8-bit gri tonlamaya dönüştürün (Image → Type → 8-bit).
- Gerekirse, bantları yatay olarak hizalamak için görüntüyü döndürün (Image → Transform → Rotate).
- Önizlemeyi (Preview) etkinleştirin ve ızgara ayarını uygun bir çizgi sayısına (örneğin, 20) getirin.
- Bantlar düzgün bir şekilde hizalanana kadar döndürme açısını ayarlayın.
- Dikdörtgen seçim aracını kullanarak, yalnızca LC3-II'ye karşılık gelen bandı kapsayacak şekilde ilk şerit etrafında bir ilgi alanı (ROI) belirleyin.
NOT: Seçim alanı, yüksekliğinin iki katından daha geniş olmamalıdır. Analize dahil edilen tüm bantlar için aynı ROI boyutlarını kullanın. - Analyze → Gels → Select First Lane seçeneğini belirleyin.
- Aynı ROI'yi bir sonraki şeride taşıyın ve ilgili bandın etrafına konumlandırın.
- Analyze → Gels → Select Next Lane seçeneğini belirleyin.
- Son şerit seçilene kadar adım 6.6 ve adım 6.7'yi tekrarlayın.
- İntensite profillerini oluşturun (Analyze → Gels → Plot Lanes).
- Her bir pik taban çizgisini belirlemek için düz çizgi aracını kullanın ve sihirli değnek (wand) aracını kullanarak bant intensitesini niceliklendirin.
- Değerleri bir yükleme kontrolüne göre normalize edin.
Sonuçlar
Bu protokol, farklı deneysel koşullar altında KPC kaynaklı bir pankreas kanseri hücre hattında LC3 dinamiklerini izlemek için Western blotting işlemini açıklamaktadır. Protokol, LC3 ve bir yükleme kontrolünün kemilüminesans görüntülerini oluşturur. Bu çalışmada, yükleme kontrolü olarak aktin kullanılmıştır.
Protokolün iki temsilci uygulaması gösterilmiştir. İlk olarak, kontrol KPC hücreleri ile gemcitabine uygulanmış KPC hücreleri karşılaştırılmıştır. Gemcitabine, pankreas kanseri hücrelerinde otofajiyi indüklediği daha önce raporlanmış kemoterapötik bir ajandır19. Şekil 2A, yükleme kontrolü olarak aktin kullanılan temsilci bir LC3 immunoblot bandını göstermektedir. Fiji'de densitometrik analizle elde edilen nicelendirme Şekil 2B'de sunulmuştur. LC3-II seviyeleri aktine göre normalize edilmiştir. Gemcitabine uygulanan hücrelerde, otofaji indüksiyonu ile tutarlı olarak, LC3-II seviyelerinde anlamlı bir %59 artış gözlemlenmiştir.
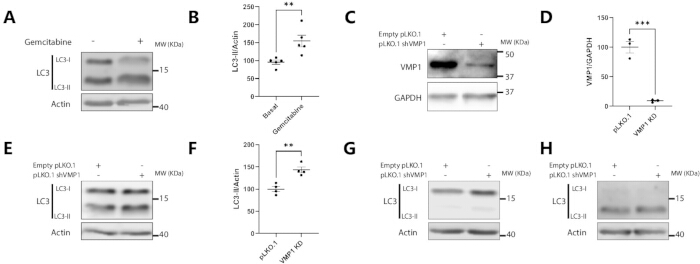
Şekil 2: KPC kaynaklı pankreas kanseri hücrelerinde LC3 immünoblot analizi: (A-B) gemcitabine etkileri, (C-F) VMP1 downregulation'ı ve (G-H) suboptimal teknik koşullar. (A–B) bazal ve gemcitabine uygulanmış koşullardaki LC3 seviyeleri. KPC kaynaklı pankreas kanseri hücrelerine 24 saat boyunca 20 µM gemcitabine uygulanmış veya hücreler işlem görmeden bırakılmıştır. Hücre lizatları LC3 ve yükleme kontrolü olarak aktin için immünlekelenmiştir. (A) LC3 ve aktin'e ait temsilci immünoblot görüntüleri gösterilmektedir. (B) Grafik, aktine göre normalize edilmiş LC3-II band densitometresinin kantifikasyonunu göstermektedir. Veriler ortalama ± SEM olarak sunulmuştur. **p < 0.01, bağımsız Student’s t-testi ile. Her koşul için n = 4. (C–D) shRNA aracılı VMP1 nakavtunun doğrulanması. Konstitütif olarak ya boş bir pLKO.1 plazmidi (pLKO.1) ya da fare VMP1 sekansını hedefleyen bir shRNA kodlayan pLKO.1 plazmidi (VMP1 KD) eksprese eden hücreler lize edilmiş ve analiz edilmiştir. (C) Yükleme kontrolü olarak GAPDH ile birlikte VMP1'in temsilci Western blot görüntüsü. (D) VMP1 KD hücrelerinde ~%90 azalma gösteren VMP1 ekspresyon seviyelerinin kantifikasyonu. Veriler ortalama ± SEM olarak sunulmuştur. ***p < 0.001, bağımsız Student’s t-testi ile. Her koşul için n=3. (E–F) VMP1 downregulation'ının LC3-II akümülasyonu üzerindeki etkisi. Konstitütif olarak boş pLKO.1 veya shVMP1 plazmidlerini eksprese eden KPC kaynaklı pankreas kanseri hücreleri lize edilmiş ve LC3 ile yükleme kontrolü olarak aktin için immünlekelenmiştir. (E) LC3 ve aktin'e ait temsilci immünoblot görüntüleri gösterilmektedir. (F) Grafik, aktine göre normalize edilmiş LC3-II band densitometresinin kantifikasyonunu göstermektedir. Veriler ortalama ± SEM olarak sunulmuştur. **p < 0.01, bağımsız Student’s t-testi ile. Her koşul için n = 5. (G-H). Suboptimal deneyler. Konstitütif olarak ya boş bir pLKO.1 ya da bir shVMP1 plazmidi eksprese eden KPC kaynaklı pankreas kanseri hücreleri lize edilmiş ve LC3 ile yükleme kontrolü olarak aktin için immünlekelenmiştir. (G) Düşük deterjan konsantrasyonuna sahip bir lizis tamponu kullanılarak hazırlanan lizatlardan elde edilen LC3 ve aktin'in temsilci immünoblot görüntüleri. (H) Fare ile reaktiviteyi garanti etmeyen bir primer antikor kullanılarak LC3'ün tespit edildiği LC3 ve aktin'in temsilci immünoblot görüntüleri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
İkinci bir deney, ya boş bir pLKO.1 plazmidi (pLKO.1) ya da fare VMP1 dizisini hedefleyen bir shRNA kodlayan pLKO.1 plazmidi (VMP1 KD) konstitütif olarak eksprese eden KPC kaynaklı pankreas kanseri hücreleri kullanılarak gerçekleştirilmiştir. Öncelikle VMP1'in başarılı bir şekilde azaltıldığı doğrulanmıştır. Şekil 2C, yükleme kontrolü olarak GAPDH içeren temsili bir VMP1 immunoblotsunu göstermekte ve Şekil 2D, VMP1 KD hücrelerinde VMP1 ekspresyonundaki %90'lık azalmayı nicelleştirmektedir. Ardından bu hücrelerde LC3-II seviyeleri değerlendirilmiştir. VMP1'in otofagozom oluşumu için gerekli olması nedeniyle, LC3-II birikiminde bir artış beklenmekteydi. VMP1'in azaltılması LC3-I'den LC3-II'ye dönüşümü engellemese de, otofagozom oluşumunu ve ardından gelen kargo degradasyonunu bozarak LC3-II birikimiyle sonuçlanır11,15. Temsili LC3 ve aktin immunoblotsları Şekil 2E'de gösterilmiş ve LC3-II/aktin oranının nicelleştirmesi Şekil 2F'de sunulmuştur. pLKO.1 kontrollerine kıyasla VMP1 KD hücrelerinde LC3-II seviyelerinde anlamlı bir %43 artış gözlemlenmiştir.
Bu sonuçlar, protokolün KPC kaynaklı bir pankreas kanseri hücre modelinde LC3-II seviyelerinin güvenilir bir şekilde tespit edilmesini ve miktarının belirlenmesini sağladığını göstermektedir. Bununla birlikte, protokolden yapılacak küçük sapmalar suboptimal sonuçlara yol açabilir.
LC3-II, LC3'ün lipide eklenmiş formu olduğu için, etkili ekstraksiyon yeterli konsantrasyonda deterjan içeren bir liziz tamponu gerektirir. Şekil 2G, Şekil 2E–F'de açıklanan aynı deneysel modelden (pLKO.1 versus VMP1 KD), ancak düşük deterjan konsantrasyonlu (50 mM Tris-HCl, pH 7.4, 250 mM NaCl, 25 mM NaF, 2 mM EDTA ve 0.1% Triton X-100) bir liziz tamponu kullanılarak elde edilen temsili LC3 ve aktin immunoblotlarını göstermektedir. Aktin sinyali kabul edilebilir düzeyde kalmasına rağmen, LC3 sinyali suboptimaldir. Yalnızca LC3-I bandı net bir şekilde görülürken, LC3-II bandı zar zor tespit edilebilmiş ve LC3-I'e kıyasla belirgin şekilde azalmıştır.
LC3 immunoblotting'de bir diğer önemli değişken, primer antikor seçimidir. Şekillerde gösterilen immunoblotlar... Şekiller 2A, 2B, 2E, 2F, ve 2G bu deneysel sistemde güçlü LC3 saptaması sağlayan bir primer antikor kullanılarak oluşturulmuştur. Buna karşılık, Şekil 2H farklı bir primer antikor ile oluşturulan ve suboptimal sonuçlar veren bir LC3 immunoblot'unu göstermektedir. Bu koşullar altında, LC3-I zar zor tespit edilebilmiş ve LC3-II sinyali, önceki deneylerde kullanılan antikor ile elde edilenden önemli ölçüde daha zayıf çıkmıştır.
Tartışma
Bu makale, KPC kaynaklı pankreas kanseri hücrelerinde klasik bir LC3 immünoblotlama protokolünün teknik optimizasyonunu ve standardizasyonunu açıklamaktadır. Otofajinin ve otofaji ile ilişkili proteinlerin pankreas kanseri gelişimi ve ilerlemesindeki giderek daha fazla kabul gören rolü göz önüne alındığında23, bu standartlaştırılmış iş akışı LC3 dinamiklerinin izlenmesi için güvenilir bir yaklaşım sunmaktadır. Protokol; kemoterapi, oksidatif stres, hipoksi, endoplazmik retikulum stresi ve gen aşırı ekspresyonu, knockdown, knockout veya mutasyon gibi genetik manipülasyonlar dahil olmak üzere çeşitli deneysel koşullar altında otofagozomal havuzu değerlendirmek için uygulanabilir. LC3 dinamiklerini değerlendirmenin yanı sıra protokol, LC3 ile ilgilenilen proteinler arasındaki doğrudan veya dolaylı etkileşimleri araştırmak için uyarlanabilir. Örneğin, bu iş akışı kullanılarak bir hedef proteinin immünopresipitasyonunun ardından elüatta LC3 tespiti gerçekleştirilebilir. Ayrıca LC3 immünoblotlama, pankreatik duktal adenokarsinomda önemi artan gelişmekte olan bir alan olan sekresyonel otofaji bağlamında hücre dışı veziküllerin analizine uygulanabilir24,25.
Şekil 2G–H'de gösterildiği gibi, küçük sapmalar suboptimal sonuçlara yol açabileceği için birkaç kritik adım dikkatle kontrol edilmelidir. En önemli hususlardan biri lizis tamponunun bileşimdir. LC3-II'nin verimli ekstraksiyonu için RIPA tamponu veya benzeri bir formülasyon gibi nispeten yüksek deterjan konsantrasyonuna sahip bir tampon gereklidir. Protein-protein etkileşimlerini korumak için immünpresipitasyon protokollerinde yaygın olarak kullanılan düşük deterjan içerikli tamponlar, LC3-II'yi yeterince çözemeyebilir. Bu koşullar altında, LC3-I saptanabilir kalabilirken LC3-II'nin saptanması zorlaşabilir veya imkansız hale gelebilir, bu da verilerin yorumlanmasını tehlikeye atar.
Bir diğer kritik faktör, incelenen deneysel sistem için valide edilmiş bir primer antikor seçmektir. Burada sunulan teknik değerlendirme, aynı üreticiden alınan iki antikorun karşılaştırılmasıyla sınırlı tutulmuştur ve birden fazla klon veya tedarikçiyi kapsayan kapsamlı bir validasyon teşkil etmemektedir. Buna rağmen bulgular, antikor performansının deneysel sistemler arasında önemli ölçüde nasıl farklılık gösterebileceğini örneklemektedir. Bu sınırlı karşılaştırmadan tür özgüllüğüne ilişkin kesin sonuçlar çıkarılamasa da, bu modelde değerlendirilen alternatif antikorun suboptimal performansı, öngörülen çapraz reaktiviteye güvenmek yerine ampirik validasyonun önemini vurgulamaktadır. Üreticinin veri sayfasına göre, bu antikor insan örnekleri için valide edilmiştir, fare reaktivitesi ise sekans homolojisine dayalı olarak öngörülmüştür. Fare hücrelerinde zayıf LC3 deteksiyonu gözlemlenmiş olsa da (Şekil 2H), aynı antikor daha önce sıçan pankreas dokusunda ve sıçan kaynaklı AR42J hücrelerinde saptanabilir sinyaller oluşturmada yetersiz kalmıştır (veriler gösterilmemiştir). Bu gözlemler, antikor performansının incelenen spesifik biyolojik model içinde valide edilmesinin önemini ortaya koymaktadır.
Optimize edilmesi gereken ek parametreler arasında jel kompozisyonu ve elektroforez koşulları yer almaktadır. Elektroforez, boya cephesinin jelin altına ulaştığı an ile 10 kDa moleküler ağırlık işaretçisinin jelden dışarı çıktığı an arasında sonlandırıldığında, %15'lik çözücü jel LC3-I ve LC3-II'nin yeterli şekilde ayrılmasını sağlar. Buna karşılık, %7'lik jeller gibi daha düşük yüzdeli jeller yeterli çözünürlük sağlamaz. LC3 düşük moleküler ağırlıklı bir protein olduğu için transfer koşulları da aynı derecede önemlidir. Yetersiz transfer süresi veya akımı transfer verimliliğini düşürebilirken, aşırı transfer süresi veya akımı proteinin membran üzerinden kaybıyla sonuçlanabilir. Daha büyük gözenek boyutuna sahip membranların kullanımı bu riski daha da artırabilir.
Protokolde birkaç modifikasyon kabul edilebilir. Hücre toplama sırasında P200 pipet uçları yerine ticari hücre kazıyıcılar kullanılabilir. Numuneler buz üzerinde tutulduğu sürece, lizisten hemen sonra dondurulmadan işlenebilir. %4–20 gradyan jeller dahil olmak üzere ticari olarak temin edilebilen poliakrilamid jeller de kullanılabilir. Burada açıklanan bloklama solüsyonunun yerine, laboratuvar sınıfı süt veya TBS-T içinde %1 BSA gibi alternatif bloklama reaktifleri kullanılabilir. Benzer şekilde, sodyum azid peroksidaz aktivitesini inhibe ettiği için horseradish peroksidaz konjuge ikincil antikorlar içeren solüsyonlardan hariç tutulduğu sürece, alternatif antikor inkübasyon tamponları kullanılabilir.
Protokol; farklı dokulardan türetilen hücre hatları ve doku lizatları dahil olmak üzere diğer deneysel sistemlere de uyarlanabilir. Ancak, iş akışı öncelikle KPC türevli pankreas kanseri hücrelerinde optimize edildiğinden, daha geniş kapsamlı uygulanabilirliği dikkatle değerlendirilmelidir. Hücre tipi, bazal otofaji seviyeleri, protein ekspresyon profilleri ve örnek bileşimindeki farklılıklar LC3 tespitini önemli ölçüde etkileyebilir. Sonuç olarak, alternatif sistemlere uyarlama muhtemelen ek optimizasyon gerektirecektir ve antikorun incelenen türle uyumluluğu her zaman doğrulanmalıdır.
LC3 immünoblotlamasının temel bir sınırlaması da vurgulanmalıdır. Yalnızca LC3-II birikimi, otofaji durumunu kesin olarak belirlemek veya artan otofaji indüksiyonu ile bozulmuş otofagozom temizliği arasındaki farkı ayırt etmek için yetersizdir. LC3-II, otofaji indüksiyonu sırasında üretilse de, otofajik sürecin bir parçası olarak lizozomlar içinde degrade edilir. Sonuç olarak, hem artmış otofaji hem de LC3 konjugasyonunun aşağısında bozulmuş otofajik akış, LC3-II birikimine yol açabilir26.
Bu sınırlama, biyolojik olarak farklı koşullar altında yüksek LC3-II seviyelerinin gözlemlendiği Şekil 2A, B ve Şekil 2E, F'de gösterilen deneylerle örneklendirilmiştir. Gemsitabin ile işlem görmüş hücrelerde LC3-II birikimi, artan VMP1 ekspresyonu ve LC3-I'den LC3-II'ye dönüşümün artmasıyla ilişkili aktif otofaji indüksiyonunu yansıtmaktadır11,19. Buna karşılık, VMP1 nakavti otofagosom olgunlaşmasını ve kleransını bozar. Bu koşullar altında LC3 lipidasyonu bozulmadan kalır, ancak kusurlu otofajik akış nedeniyle LC3-II degradasyonu engellenir; bu durum, otofajik ilerleme bozulmuş olmasına rağmen LC3-II birikimiyle sonuçlanır22. Bu farklı biyolojik durumlar yalnızca LC3 immunoblot analizi ile ayırt edilemediğinden, otofajik akışın titiz bir şekilde değerlendirilmesi için SQSTM1/p62 analizi ve lizozomal inhibisyon deneyleri gibi tamamlayıcı yaklaşımlar gereklidir26.
Bu tamamlayıcı yaklaşımlarla birleştirildiğinde, LC3 immunoblotting, otofajiyi izlemek için en erişilebilir ve bilgilendirici yöntemlerden biri olmaya devam etmektedir. Alternatif tekniklerin de kısıtlamaları vardır. İmmünofloresan ile LC3 puncta miktarının belirlenmesi27, artmış otofaji ile bozulmuş akışı güvenilir bir şekilde ayırt edemez ve standardize edilmesi ile otomatikleştirilmesi zor olabilir. Bununla birlikte, immünofloresan daha az biyolojik materyal gerektirir ve bu nedenle insan biyopsileri gibi sınırlı klinik örnekler için avantajlı olabilir. Ayrıca, LC3 immunoblotting transfeksiyon tabanlı raporlayıcı sistemler gerektirmez, böylece protein aşırı ekspresyonuyla ilişkili artefaktların önüne geçer. Son olarak, konvansiyonel akış sitometrisi, LC3-I ile LC3-II'yi ayırt etmek için yeterli çözünürlüğe sahip değildir ve bu durum otofajik aktiviteyi değerlendirmedeki faydasını sınırlar.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Bu çalışma, Consejo Nacional de Investigaciones Científicas y Técnicas (CONICET) [PIP 2021–2023 GI-11220200101549CO], Agencia Nacional de Promoción de la Investigación, el Desarrollo Tecnológico y la Innovación (Agencia I+D+i) [PICT-2021-I-A-00328], Universidad de Buenos Aires [UBACyT 2023–2025, 20020220300232BA] ve Fundación Norberto Quirno, Ciudad de Buenos Aires tarafından sağlanan hibelerle desteklenmiştir.
Yazarlar, Disease Models & Mechanisms tarafından verilen bir Gezi Bursu aracılığıyla sağlanan finansal destek için The Company of Biologists'a şükranlarını sunar. Bu destek, fonlanan ziyaret kapsamında ortaya çıkan çalışmaya katkıda bulunmuştur. Kurum hakkında daha fazla bilgiye https://www.biologists.com/ adresinden ulaşılabilir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| C-DiGit Blot Tarayıcı | LI-COR BioScience | 3600 | Adım 5.6'daki kemilüminesans deteksiyonu için kullanılır. |
| 10x Fosfat Tamponlu Salin (PBS) | Corning | 46-013-CM | Adım 1.1'deki pasajlama öncesinde hücreleri yıkamak için steril 1x PBS hazırlamak amacıyla kullanılır. |
| 2-Merkaptoetanol (β-merkaptoetanol) | Sigma-Aldrich (Merck) | M3148 | 4 hazırlamak için kullanılır× Adım 3.8'de SDS-PAGE numune hazırlığı için kullanılan Laemmli numune tamponu. |
| 3B Çalkalayıcı | DLAB | SK-D1807-E | Bloklama, primer ve sekonder antikor çözeltilerinde inkübasyonun yanı sıra yıkama basamaklarında (Adım 4.6, 4.8, 4.9, 4.11, 4.12 ve 4.13) membranların inkübasyonu için kullanılır. |
| 6 Kuyucuklu Hücre Kültür Plakası | SORFA | SCP-11-006 | Adım 1.1'de hücre ekimi yapmak için kullanılır. |
| Akrilamid | Sigma-Aldrich (Merck) | A8887 | Adım 4.2 için gerekli olan %15'lik SDS-PAGE jelinin hazırlanmasında kullanılır–4.5. |
| Anti-Gliseraldehit-3-Fosfat Dehidrogenaz, fare monoklonal, klon 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 Reaktivite: insan, kedi, domuz, fare, tavşan, balık, köpek, sıçan. Knockdown verimliliğini değerlendirmek için yükleme kontrolü olarak kullanılmıştır (Şekil 2C ve 2D). |
| Anti-fare IgG, HRP-bağlı Antikor | Hücre Sinyalizasyon Teknolojisi | 7076 | RRID: AB_330924. Adım 4.10'da sekonder antikor çözeltisini hazırlamak için kullanılmıştır. |
| Tavşan IgG'ye karşı, HRP bağlantılı antikor | Hücre Sinyalizasyon Teknolojisi | 7074 | RRID: AB_2099233. Adım 4.10'da sekonder antikor çözeltisini hazırlamak için kullanılmıştır. |
| Anti-β-Aktin (ACTB) Antikoru fare monoklonal, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 Reaktivite: koyun, sazan, kedi, tavuk, sıçan, fare, Hirudo medicinalis, tavşan, köpek, domuz, insan, sığır, guinea pig. Şekil 2A, 2B, 2E, 2F, 2G ve 2H'de yükleme kontrolü olarak kullanılmıştır. |
| Bromofenol mavisi | Sigma-Aldrich (Merck) | B0126 | 4'ü hazırlamak için kullanılır× Adım 3.8'deki SDS-PAGE örnek hazırlama işlemi için Laemmli örnek tamponu. |
| Etilendiamintetraasetik asit (EDTA) | Sigma-Aldrich (Merck) | E9884 | Düşük deterjanlı liziz tamponunun hazırlanmasında kullanılmıştır (Şekil 2G ve 2H). |
| Fetal Bovin Serum | NATOCOR | Lintc-634 | Hücre kültürü için tam besiyeri hazırlamak amacıyla kullanılır (Adım 1 ve 2). |
| Fiji | Açık kaynaklı yazılım | Lütfen çevirmek istediğiniz metni sağlayın. | Görüntü analiz yazılımı |
| Gliserol | Sigma-Aldrich (Merck) | G5516 | 4 hazırlamak için kullanılır× Adım 3.8'deki SDS-PAGE örnek hazırlığı için Laemmli örnek tamponu. |
| Glisin | Sigma-Aldrich (Merck) | G7126 | Adım 4.5 için transfer tamponu hazırlamak amacıyla kullanılır. |
| İmmün-Blot PVDF Membran, Rulo, 0.2 µm, 26 cm x 3,3 m | Bio-Rad | 1620177 | Adım 4.5'teki transfer işlemi için kullanılır. |
| Intercept (TBS) Bloklama Tamponu | LI-COR BioScience | 927-60001 | Adım 4.6'da bloklama yapmak ve Adım 4.7 ile 4.10'da birincil ve ikincil antikor çözeltilerini hazırlamak için kullanılır. |
| LC3 A/B (D3U4C) Tavşan Monoklonal Antikoru | Hücre Sinyalleme Teknolojisi | 12741 | RRID: AB_2617131 Reaktivite: insan, fare, tavşan. Adım 4.7'de primer antikor çözeltisini hazırlamak için kullanılır. |
| LC3B (D11) Tavşan Monoklonal Antikoru | Hücre Sinyalizasyon Teknolojisi | 3868S | RRID: AB_2137707 Reaktivite: İnsan. Şekil 2H'de LC3 primer antikoru olarak kullanılmıştır. |
| Metanol | Anedra | 6197 | Adım 4.5'te PVDF membranı aktive etmek ve transfer tamponu hazırlamak için kullanılır. |
| Millex-HV Şırınga Filtre Ünitesi, 0.45 μm PVDF | Merck Millipore | SLHV033RS | Lentivirüs içeren ortamı filtrelemek için kullanılır (Adım 1.1). |
| Mini dijital kuru banyo | Labnet International, Inc. | D 5060075 | Adım 4.1'deki örnekleri ısıtmak için kullanılır. |
| Mini-PROTEAN Tetra elektroforez sistemi | Bio-Rad | 1658025FC | Adım 4.2, 4.3 ve 4.5'teki SDS-PAGE ve transfer işlemleri için kullanılır. |
| Fare Vmp1'ini hedefleyen MISSION shRNA (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | Stabil VMP1-knockdown hücre hatları oluşturmak için kullanıldı (Adım 1.1). |
| N,N'-Metilenbisakrilamid (Bis-akrilamid) | Sigma-Aldrich (Merck) | M7279 | Adım 4.2 için gerekli olan %15'lik SDS-PAGE jelinin hazırlanmasında kullanılır–4.5. |
| Nabigem 1g Gemcitabin | Microsules Argentina | Lütfen çevirmek istediğiniz metni sağlayın. Metni gönderdiğinizde, belirttiğiniz akademik standartlara ve teknik kriterlere uygun olarak profesyonelce Türkçeye çevireceğim. | Adım 2'deki gemcitabine tedavisi için kullanılır. |
| Penisilin-Streptomisin Çözeltisi | Sartorius | 03-031-1B | Hücre kültürü için komple besiyeri hazırlamak amacıyla kullanılır (Adım 1 ve 2). |
| Pierce BCA Protein Analiz Kiti | Thermo Fisher Scientific | 23227 | Protein miktar tayini için kullanılır (Adım 3.7). |
| Pierce Proteaz İnhibitör Tabletleri | Thermo Fisher Scientific | A32953 | Adım 3.2'de liziz tamponu hazırlamak için kullanılır. |
| Polyethylenimine HCl MAX, Lineer (PEI MAX), MW 40.000 | Polysciences | 24765-1 | Lentiviral plazmidlerle transfeksiyon yapmak için kullanılır (Adım 1.1). |
| Potasyum klorür (KCl) | Sigma-Aldrich (Merck) | P9333 | Adım 3.1'de PBS hazırlamak için kullanılır. |
| Potasyum fosfat monobazik (KH2PO4)2PO4) | Sigma-Aldrich (Merck) | P5655 | Adım 3.1'de PBS hazırlamak için kullanılır. |
| PowerPac Temel Güç Kaynağı | Bio-Rad | 1645050 | Adım 4.2, 4.3 ve 4.5'teki SDS-PAGE ve transfer işlemleri için kullanılır. |
| Önceden Boyanmış Protein Markörü | Genbiotech | PM201 | Adım 4.2 - 4.4'teki SDS-PAGE işlemi için kullanılır. |
| Puromisin (10 mg/mL çözelti) | InvivoGen | ant-pr-1 | Stabil olarak transduksiyonu gerçekleştirilmiş hücrelerin seçimi için kullanılır (Adım 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | Hücre kültürü için tam besiyeri hazırlamak amacıyla kullanılır (Adım 1 ve 2). |
| Sodyum klorür (NaCl) | Sigma-Aldrich (Merck) | S9888 | Adım 3.1'deki PBS'nin, Adım 3.2'deki lizis tamponlarının ve Adım 4.9'daki TBS'nin hazırlanmasında kullanılır. |
| Sodyum dodekil sülfat (SDS) | Sigma-Aldrich (Merck) | L3771 | Adım 3.2'de lizis tamponunu ve Adım 4.2 için gerekli olan %15'lik SDS-PAGE jelini hazırlamak için kullanılır–4.5. |
| Sodyum florür (NaF) | Sigma-Aldrich (Merck) | S7920 | Düşük deterjanlı liziz tamponunun hazırlanmasında kullanıldı (Şekil 2G ve 2H). |
| Sodyum fosfat dibazik (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | Adım 3.1'de PBS hazırlamak için kullanılır. |
| Sorval ST 16R Santrifüj | Thermo Fisher Scientific | 75004380 | Adım 1.1'deki hücrelerin ve Adım 3.5'teki lizatların santrifüjlenmesi için kullanılır. |
| SuperSignal West Pico PLUS kemilüminesans substratı | Thermo Fisher Scientific | 34577 | Adım 5.1'deki kemilüminesans saptaması için kullanılır. |
| Thermo Scientific 1300 Serisi A2 Sınıf II, Tip A2 Biyogüvenlik Kabini | Thermo Fisher Scientific | 1386 | Adım 1.1, 1.3 ve 2.1'deki steril hücre kültürü işlemleri için kullanılır. |
| Thermo Scientific BB 150 CO2 İnkübatör | Thermo Fisher Scientific | BB150-2TCS-L | Adım 1.2 ve 2.2'de hücre kültürü için kullanılır. |
| TMEM49/VMP1 (D1Y3E) Tavşan Monoklonal Antikoru | Hücre Sinyalizasyon Teknolojisi | 12929 | RRID: AB_2714018 Reaktivite: insan, fare, sıçan. Şekil 2C ve 2D'de VMP1 nakavt verimliliğini doğrulamak için primer antikor olarak kullanılmıştır. |
| Tris bazı | Sigma-Aldrich (Merck) | T1503 | Adım 4.5 için transfer tamponu hazırlamak amacıyla kullanılır. |
| Tris hidroklorür (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | Adım 3.2 ve 4'te lizis tamponlarının hazırlanmasında kullanılır.× Adım 3.8'deki Laemmli örnek tamponu, Adım 4.2 için gerekli olan %15'lik SDS-PAGE jeli–4.5 ve Adım 4.9'daki TBS. |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | Adım 3.2'de liziz tamponlarının hazırlanmasında kullanılır. |
| Tripsin EDTA | Gibco | 11570626 | Adım 1.1'de hücrelerin pasajlanması için kullanılır. |
Kaynaklar
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında