Bu çalışma, NSCLC'deki glutatyon duyarlı abazik bölge tutucu ön ilaçların potansiyel protein etkileşimlerini önceliklendirmek için ağ farmakolojisi, moleküler kenetlenme, moleküler dinamik ve MM-PBSA'yı entegre etmiştir. Bileşik 5, MMP9 ve SRC takibi için önceliklendirilmiştir; ancak bunlar hesaplamalı adaylar olarak kalmaya devam etmektedir. Bulgular hipotez üretici niteliktedir ve biyokimyasal ve hücre tabanlı doğrulama gerektirmektedir.
Araştırma makalesi
Küçük Hücreli Dışı Akciğer Kanserinde Glutatyonla Yanıt Veren Abazik Saha Tuzaklayan Ön İlaçlar İçin Potansiyel Protein Etkileşimlerinin In Silico Önceliklendirmesi
Bu makalede
Özet
Özet
Küçük hücreli dışı akciğer kanseri (NSCLC), kansere bağlı ölümlerin başlıca nedenlerinden biri olmaya devam etmektedir ve tedavi etkinliği sıklıkla kazanılmış direnç ve sistemik toksisite ile sınırlanmaktadır. Glutatyon yanıtlı abazik bölge tutucu ön ilaçlar önceki deneysel çalışmalarda seçici antikanser aktivite göstermiştir, ancak salınan metabolitlerinin kanserle ilişkili proteinlerle anlamlı etkileşimler gösterip göstermediği henüz belirlenmemiştir. Burada, iki glutatyon yanıtlı ön ilaç (Bileşik 1 ve Bileşik 2), bunların aminooksi içeren ürünleri (Bileşik 4 ve Bileşik 5) ve eşleştirilmiş tutucu olmayan bir kontrol çifti (Bileşik 3 ve Bileşik 6) için test edilebilir protein etkileşim hipotezlerini önceliklendirmek amacıyla ağ farmakolojisi, moleküler kenetleme, moleküler dinamik (MD) ve moleküler mekanik Poisson-Boltzmann yüzey alanı (MM-PBSA) analizini birleştiren entegre bir in silico iş akışı kullanılmıştır. Kesişen yirmi bir bileşik ve hastalıkla ilişkili hedef belirlenmiş; protein-protein etkileşim topolojisi ile AKT serin/treonin kinaz 1 (AKT1), epidermal büyüme faktörü reseptörü (EGFR), tümör nekroz faktörü (TNF), matriks metalloproteinaz 9 (MMP9) ve SRC proto-onkogen reseptör dışı tirozin kinaz (SRC) önceliklendirilmiştir. Bileşik 5, MMP9 ile en uygun tekil AutoDock Vina skorunu (-8.418 kcal·mol⁻1) üretmiş ve MMP9 ve SRC MD yörüngeleri boyunca karşılaştırmalı olarak kalıcı kenetleme kaynaklı pozlar sergilemiştir. Ancak, en üst sırada yer alan MMP9 pozu, katalitik Zn2⁺ iyonunun doğrudan koordinasyonunu veya His401, Glu402, His405 veya His411'in doğrudan etkileşimini göstermemiştir, bu nedenle kanonik bir MMP9 inhibitör bağlanma modu atanamaz. MD ve MM-PBSA analizleri yalnızca yörünge davranışını ve bu komplekslerin göreceli enerjik sıralamasını tanımlar; hücre içi hedef etkileşimini, enzim inhibisyonunu veya yolak düzenlemesini kanıtlamaz. Bu nedenle, belirlenmiş abazik bölge tutucu aktivite ve yeni öngörülen protein etkileşimleri, kanıtlanmış bir mekanistik zincirden ziyade ayrı, potansiyel olarak paralel hipotezler olarak değerlendirilmektedir. Genel olarak sonuçlar, gelecek testler için belirli bileşik-hedef çiftlerini önceliklendirmekte ancak çoklu hedefli bir anti-NSCLC mekanizması kurmamaktadır.
Giriş
Küçük hücreli dışı akciğer kanseri (KHDAK), akciğer kanserinin en yaygın histolojik alt tipidir ve dünya çapında kansere bağlı ölümlerin temel nedenlerinden biri olmaya devam etmektedir1. Hedefe yönelik tedavilerde ve hassas onkolojide önemli ilerlemeler kaydedilmiş olsa da, uzun süreli tedavi etkinliği sıklıkla sonradan gelişen direnç, sınırlı yanıt süresi ve tedaviye bağlı toksisite nedeniyle sekteye uğramaktadır2. Epidermal büyüme faktörü reseptörü (EGFR) hedefli ajanlar, moleküler olarak seçilmiş hastalarda sonuçları iyileştirmiştir; ancak tedavi sırasında neredeyse kaçınılmaz olarak direnç gelişmekte, bu da alternatif veya tamamlayıcı mekanizmalarla etki eden terapötik stratejilere yönelik acil bir ihtiyaç yaratmaktadır3,4. Geleneksel platin bazlı kemoterapi tedavinin önemli bir bileşeni olmaya devam etmektedir, ancak klinik faydası uzun süreli kullanım sırasında kümülatif toksisite ve direnç nedeniyle sınırlanmaktadır5,6. Tüm bu kısıtlamalar, hem mekanizması farklı olan hem de tümör ortamında seçici olarak aktive edilen antitümör ajanların belirlenmesi gerekliliğini vurgulamaktadır.
Endojen DNA lezyonları arasında, abazik veya apirimidinik bölgeler oldukça yaygındır ve biyolojik olarak önemlidir; her hücrede her gün binlerce lezyon oluşur7. Bu lezyonlar verimli bir şekilde onarılmadığında, genomik instabiliteyi ve hücre ölümünü tetikleyebilen zincir kırılmalarına dönüşebilirler8,9. Apurinik/apirimidinik endonükleaz 1, abazik bölgeleri keserek sonraki onarım işlemlerini mümkün kıldığı için baz eksizyon onarım yolağında merkezi bir enzimdir10,11. Bu onarım bağımlılığı, abazik bölgeyle ilişkili hasarı antikanser ilaç geliştirme için cazip bir hedef haline getirmiştir12. Bu mantığa dayanarak, tümör hücrelerinin yüksek glutatyon ortamından yararlanmak amacıyla daha önce glutatyon duyarlı abazik bölge tutucu ön ilaçlar geliştirilmiştir. Bu ilaçların glutatyon tarafından tetiklenen ürünleri, aldehitik abazik bölgeleri tutma kapasitesine sahip bir aminooksi fonksiyonelliği içerir ve önceki deneysel çalışmalar H1299 hücrelerinde seçici sitotoksisite, hücre döngüsü durması ve apoptoz olduğunu göstermiştir13. Bu veriler, bileşik tasarımının DNA lezyonu tutucu bileşenini desteklemektedir. Ancak bu veriler, MMP9, SRC, EGFR, AKT1 veya TNF'nin abazik bölge tutulmasının aşağısında düzenlendiğini göstermemektedir. Bu nedenle, mevcut hesaplamalı analizde tanımlanan herhangi bir protein-hedef etkileşimi, her iki süreç aynı biyolojik sistemde kanıtlanmadığı sürece ayrı bir hipotez olarak değerlendirilmelidir.
Mevcut çalışma bu ayrım üzerine tasarlanmıştır. Biyolojik gerekçenin ilk düzeyi, daha önce belirlenmiş olan glutatyonla duyarlı salım ve abazik bölge tuzaklama kimyasıdır14. Burada incelenen ikinci düzey ise keşifsel bir sorudur: ana ön ilaçların veya salınan ürünlerinin seçilen kanserle ilişkili proteinlerle hesaplamalı olarak uyumlu olup olmadığıdır. Aday proteinlere öncelik vermek için ağ farmakolojisi kullanılmış, ardından seçilen protein-ligand komplekslerini incelemek için docking, MD ve MM-PBSA analizleri uygulanmıştır15,16. Bu hesaplamalar, öngörülen proteinlerin bilinen DNA hasarı fenotipini aracılık ettiğini kanıtlamayı veya abazik bölge tuzaklama ile onkogenik sinyalleme arasında nedensel bir bağlantı kurmayı amaçlamamıştır. Bunun yerine iş akışı, daha sonra doğrudan bağlanma, enzim aktivitesi, yolak, DNA hasarı ve fenotip analizleri ile değerlendirilebilecek, deneysel olarak test edilebilir sıralı bir hipotez seti oluşturmak için kullanılmıştır.
Protokol
Bu çalışma tamamen hesaplamalı olduğu ve insan katılımcılar, omurgalı hayvanlar, hasta kaynaklı biyolojik örnekler veya tanımlanabilir kişisel veriler içermediği için kurumsal inceleme kurulu onayı gerekmemiştir. Bu nedenle, bilgilendirilmiş onam uygulanmamıştır. Bu protokolde kullanılan tüm veri tabanları, yazılım paketleri, kuvvet alanları ve hesaplama kaynakları Materyaller Tablosu'nda listelenmiştir.
Çalışma bileşikleri ve analitik iş akışı
Daha önce bildirilmiş olan glutatyon yanıtlı abazik bölge tutucu bileşikler, çalışma molekülleri olarak kullanılmıştır17. Glutatyonla tetiklenen parçalanma sırasıyla aminooksi içeren ürünler olan Bileşik 4 ve Bileşik 5'i oluşturduğu için, başlangıç ön-ilaçları olarak Bileşik 1 ve Bileşik 2 seçilmiştir. Abazik bölgeyle reaktif olan aminooksi grubunu koruyan salınmış türleri temsil ettikleri için Bileşik 4 ve Bileşik 5 yapısal analiz için seçilmiştir. Bileşik 3, eşleşmiş bir glutatyon yanıtlı yapısal kontrol olarak dahil edilmiştir; bu bileşiğin parçalanma ürünü olan Bileşik 6, abazik bölge aldehitlerinin kovalent olarak tutulması için gerekli olan aminooksi fonksiyonelliğinden yoksundur. Buna göre, başlangıç iskeletlerini karşılaştırmak için Bileşik 1–3 ters hedef tahminine dahil edilmiş, Bileşik 4 ve Bileşik 5 öncelikli proteinlere karşı değerlendirilmiş ve Bileşik 6, SRC MD karşılaştırmasında negatif kontrol ligandı olarak kullanılmıştır. SRC–Bileşik 6 yörüngesi, aminooksi grubunun kendisinin SRC bağlanmasını belirlediğine dair bir kanıt olarak değil, aminooksi içeren Bileşik 5 sistemi için eşleşmiş bir yapısal karşılaştırıcı sağlamak amacıyla dahil edilmiştir. Bileşik 1–6'nın kimyasal yapıları ve aktivasyon ilişkileri Şekil 1'de gösterilmiştir. Bu tasarım, yerleşik DNA lezyon tutma kimyasını, olası protein etkileşimlerine yönelik mevcut hipotez oluşturma analizinden kasıtlı olarak ayrı tutmaktadır.
Bileşiklerle ilişkili hedeflerin öngörülmesi
Bileşik 1, Bileşik 2 ve Bileşik 3'ün iki boyutlu yapıları MDL MOL formatında kaydedilmiş ve kanonik SMILES (simplified molecular-input line-entry system) çıktı formatına sahip Open Babel versiyon 3.1.1 kullanılarak kanonik SMILES dizilerine dönüştürülmüştür18. Dışa aktarılan her dizi yeniden içe aktarılmış ve yeniden oluşturulan yapı, tür seçeneği Homo sapiens olarak sınırlandırılarak SwissTargetPrediction'a gönderilmeden önce ilgili iki boyutlu yapı ile görsel olarak çapraz kontrol edilmiştir19. Sıfırdan farklı olasılık değerlerine sahip öngörülen hedefler tutulmuştur. Üç bileşik için elde edilen hedef listeleri birleştirilmiş, mükerrer kayıtlar kaldırılmış ve kalan hedefler, daha ileri analizler öncesinde resmi insan gen sembollerine göre standart hale getirilmiştir. Standartlaştırılmış bileşik-hedef çiftleri, öngörülen hedef ilişkilerini görselleştirmek amacıyla; bileşiklerin ve öngörülen hedeflerin düğümlerle, bileşik-hedef ilişkilerinin ise kenarlarla temsil edildiği bir ağ tablosu olarak ağ görselleştirme ve analiz yazılımına aktarılmıştır20.
Hastalıkla ilgili hedeflerin geri çağrılması ve kesişen hedeflerin belirlenmesi
Hastalıkla ilişkili hedefler, “lung cancer H1299” arama terimi kullanılarak GeneCards veri tabanından elde edilmiştir21. Bu sorguyla daha güçlü ilişkisi olan genleri belirlemek için 0,27'den büyük bir alaka puanı eşiği uygulanmıştır. Gen sembolleri standartlaştırılmış ve yinelenen kayıtlar manuel olarak kaldırılmıştır. Bileşik tarafından tahmin edilen hedefler ile hastalıkla ilişkili hedefler arasındaki örtüşme, çevrimiçi Venn diyagramı/kesişim analiz aracı kullanılarak belirlenmiştir22. Sonraki protein-protein etkileşimi (PPI), zenginleştirme ve hedef önceliklendirme analizleri için yalnızca kesişen hedefler tutulmuştur.
Protein-protein etkileşim analizi ve temel hedeflerin taranması
Kesişen hedefler, tür seçeneği Homo sapiens olarak sınırlandırılmış ve minimum gerekli etkileşim skoru 0,40023 olarak ayarlanmış olan Search Tool for the Retrieval of Interacting Genes/Proteins (STRING) versiyon 11.5'e gönderildi. Elde edilen PPI verileri, görselleştirme ve topoloji analizi için Cytoscape versiyon 3.10.0'e aktarıldı. Bir ağ topolojisi analizi eklentisi aracılığıyla, orijinal 21 düğümlü PPI ağındaki her bir düğüm için derece, arasılık merkeziliği (betweenness centrality) ve yakınlık merkeziliği (closeness centrality) hesaplandı; elde edilen değerler daha sonra aşağıda açıklanan ardışık medyan tabanlı filtreleme için kullanıldı24. Merkezilik metrikleri orijinal 21 düğümlü PPI ağı üzerinden hesaplandı ve ardından ardışık filtreleme için kullanıldı. Orijinal ağın medyan derecesi 12 idi ve derecesi ≥ 12 olan düğümler tutularak 13 aday elde edildi. Bu 13 aday arasında medyan arasılık merkeziliği 0,031293 ve medyan yakınlık merkeziliği 0,769231 idi. İkinci filtre, arasılık merkeziliği ≥ 0,031293 ve yakınlık merkeziliği > 0,769231 olan düğümleri tutarak beş hub adayı belirledi: AKT1, EGFR, TNF, MMP9 ve SRC. Bildirilen merkezilik değerleri, alt küme oluşturulduktan sonra yeniden hesaplanmak yerine orijinal 21 düğümlü ağdan aktarıldı. Son beş hub adayı, sonraki yapısal analizler için kullanıldı. Orijinal topoloji metrikleri, 21 düğüm ve 116 kenar içeren yönlendirilmemiş bir PPI ağına karşılık gelmektedir.
Gen Ontolojisi ve Kyoto Genler ve Genomlar Ansiklopedisi zenginleştirme analizi
Kesişen hedefler, türü Homo sapiens ile sınırlandırılarak Database for Annotation, Visualization and Integrated Discovery (DAVID) kullanılarak Gen Ontolojisi (GO) ve Kyoto Encyclopedia of Genes and Genomes (KEGG) zenginleştirme analizine tabi tutulmuştur25. GO zenginleştirmesi biyolojik süreç (BP), hücresel bileşen (CC) ve moleküler fonksiyon (MF) ile KEGG sinyal yolları açısından değerlendirilmiştir. Bu keşifçi analiz için, zenginleştirme girdilerini tutmak amacıyla nominal p < 0.10 dahil etme eşiği kullanılmıştır; Benjamini-düzeltilmiş p-değerleri, Bonferroni değerleri, yanlış keşif oranları ve Fisher'ın kesin test değerleri ek tablolarda raporlanmış ancak tutulan seti tanımlamak için kullanılmamıştır. Tutulan girdiler nominal p-değerine göre sıralanmıştır. İlerideki görselleştirme ve yorumlama için, ilk 20 KEGG yolu ve her bir GO kategorisinden ilk 10 terim tutulmuştur. Çubuk grafikler ve kabarcık grafikleri, çevrimiçi bir biyoinformatik görselleştirme aracı kullanılarak oluşturulmuştur.
Moleküler kenetleme için reseptörlerin ve ligandların hazırlanması
Önceliklendirilen proteinlerin kristal yapıları RCSB Protein Veri Bankası'ndan (PDB) elde edilmiştir: AKT1, PDB ID 3O96; EGFR, PDB ID 5UWD; TNF, PDB ID 2AZ5; MMP9, PDB ID 1GKC ve SRC, PDB ID 2H8H. Kenetleme (docking) için kullanılan protein yapıları, moleküler görselleştirme yazılımında birlikte kristalleşmiş ligandların ve su moleküllerinin kaldırılmasıyla hazırlanmış, ardından kenetleme hazırlama yazılımında işlenmiştir. MMP9 için, PDB 1GKC'nin modifiye edilmemiş bir kopyası, katalitik Zn2⁺ ortamı ve N2-[(2R)-2-{[formil(hidroksi)amino]metil}-4-metilpentanoyl]-N,3-dimetil-L-valinamid (NFH) bağlanma modu için kristalografik referans olarak ayrı tutulmuştur. 1GKC'nin A zincirinde, katalitik Zn2⁺; sırasıyla 2,21, 2,23 ve 2,22 Å mesafelerinde His401, His405 ve His411 tarafından koordine edilirken, iki NFH oksijen atomu Zn2⁺'yi 2,07 ve 2,38 Å mesafelerinde koordine etmektedir; Glu402 ise katalitik asit/baz kalıntısıdır. Bu kristalografik temaslar, Bileşik 5 kenetleme etkileşim haritasını değerlendirmek için pozitif yapısal referans olarak kullanılmıştır. SRC için, SRC MD hesaplamalarında PDB 2H8H kullanılmıştır. Bu yapısal karşılaştırmalar yalnızca yorumlama amacıyla kullanılmış olup, enzim inhibisyonu veya hücre içi hedef etkileşiminin kanıtı olarak değerlendirilmemiştir.
Bileşik 4 ve Bileşik 5'in üç boyutlu yapıları PubChem'den alınmış ve moleküler modelleme yazılımı kullanılarak enerji minimizasyonu ile optimize edilmiştir26. Ligandlar fizyolojik koşullar altında protonlanmış ve enerji gradyanı 0.01 kcal·mol⁻1·Å⁻1 değerinin altına düşene kadar Merck moleküler kuvvet alanı 94 (MMFF94) kullanılarak minimize edilmiştir. Docking hazırlık yazılımında hidrojen atomları eklenmiş, Gasteiger yükleri atanmış ve dönebilen bağlar tanımlanmıştır. Yakalayıcı olmayan Bileşik 3 kontrolünün glutatyon ile parçalanma ürünü olan Bileşik 6, aynı iş akışı kullanılarak hazırlanmış ve eşleştirilmiş kontrol MD yörüngesi için başlangıç pozunu oluşturmak amacıyla yalnızca SRC'ye dock edilmiştir. Dolayısıyla, Bileşik 6 ne ek bir öngörülen terapötik ligand olarak sunulmuş ne de çoklu hedef mekanizmasını desteklemek için kullanılmıştır.
Moleküler kenetlenme prosedürü
Moleküler kenetleme, reseptörlerin rijit tutulduğu ve ligandların esnek bırakıldığı yarı esnek bir kenetleme protokolü altında, moleküler kenetleme yazılımı kullanılarak gerçekleştirilmiştir27,28. Her bir reseptör için kenetleme kutusu, arama bölgesinin deneysel olarak tanımlanmış bağlanma cebine karşılık gelmesi amacıyla, ko-kristalize ligandın konumuna merkezlenmiştir. Kenetleme kutusu boyutları AKT1, EGFR ve SRC için 24 Å × 24 Å × 24 Å, MMP9 için 26 Å × 26 Å × 26 Å ve TNF için 28 Å × 28 Å × 28 Å olarak ayarlanmıştır. Kapsamlılık (exhaustiveness) 32, çıktı poz sayısı 20 ve enerji aralığı 4 kcal·mol⁻1 olarak belirlenmiştir. Etkileşim analizi için her bir kenetleme çalışmasından en yüksek sıralamaya sahip konformasyon saklanmıştır.
Docking kurulumunun iç güvenilirliğini değerlendirmek için, her bir ko-kristalize ligand, aynı parametreler kullanılarak ilgili reseptör cebine yeniden dock edildi ve kabul kriteri olarak 2,0 Å altındaki ağır atom ortalama karekök sapması (RMSD) kullanıldı. Final pozlar, moleküler görselleştirme yazılımında incelendi. MMP9–Bileşik 5 kompleksi için, tutulan etkileşim haritası özellikle katalitik Zn2⁺ iyonuna olan açıklanmış doğrudan ligand koordinasyonu ve His401, Glu402, His405 ve His411 ile olan temaslar açısından incelendi ve ligand pozisyonu, PDB 1GKC'deki kristalografik NFH pozu ile karşılaştırıldı. Kantitatif metal koordinasyon mesafesi, yalnızca tutulan pozda doğrudan ligand-Zn2⁺ koordinasyonu belirgin olduğunda raporlandı; aksi takdirde, çıkarım yapmak yerine uygun değil olarak tanımlandı. Bu nedenle, bu kanonik katalitik bölge özelliklerinden yoksun olan bir MMP9 docking pozu, kanonik olmayan olarak kategorize edildi ve MMP9 enzimatik inhibisyonunun kanıtı olarak yorumlanmadı. Daha genel olarak, AutoDock Vina skorları ve docking pozları, bağlanma afinitesinin veya hücre içi hedef etkileşiminin kanıtı olarak değil, göreceli önceliklendirme ve hipotez üretimi için kullanıldı.
Moleküler dinamik protokolü
MD analizi için seçilen protein-ligand kompleksleri, docking'den elde edilen bağlanma pozlarından oluşturulmuştur. MD hesaplamaları GROMACS29 ile gerçekleştirilmiştir. Proteinler CHARMM36 kuvvet alanı kullanılarak parametrize edilirken, ligand atom tipleri ve parametreleri ikinci nesil General Amber Force Field (GAFF2)30,31 ile atanmıştır. Austin Model 1-bond charge correction (AM1-BCC) kısmi yükleri, küçük molekül parametrizasyon ve ligand topolojisi oluşturma araçları aracılığıyla üretilmiştir; ardından ligand topolojisi oluşturma yazılımı GROMACS ile uyumlu ligand topolojisi dosyalarını oluşturmuştur32,33,34. Her bir kompleks, minimum 1.0 nm çözünen-kutu mesafesi ile periyodik sınır koşulları altında bir TIP3P su kutusuna yerleştirilmiştir. Her sistemdeki net yükü nötralize etmek için sodyum ve klorür iyonları eklenmiş ve final iyonik gücün 0.15 M olması için ek NaCl eklenmiştir.
Enerji minimizasyonu, maksimum kuvvet 1000 kJ·mol⁻1·nm⁻1 değerinin altına düşene kadar en dik iniş (steepest-descent) algoritması kullanılarak gerçekleştirilmiştir. Minimize edilen sistemler daha sonra, protein ana zincirine konum kısıtlamaları uygulanarak 310 K ve 1 bar'da sabit parçacık sayısı, basınç ve sıcaklık (NPT) koşulları altında dengelenmiştir. Sıcaklık V-rescale termostatı ile, basınç ise Parrinello-Rahman barostatı ile kontrol edilmiştir. Uzun menzilli elektrostatik etkileşimler, parçacık ağ Ewald (particle mesh Ewald) yöntemi kullanılarak hesaplanmıştır. Kısa menzilli elektrostatik kesme sınırı ve van der Waals kesme sınırı 1.0 nm olarak belirlenmiş ve hidrojen atomlarını içeren tüm bağlar doğrusal kısıt çözücü (LINCS) algoritması kullanılarak sabitlenmiştir. Üretim yörüngeleri 2-fs entegrasyon zaman adımıyla 150 ns boyunca oluşturulmuş ve koordinatlar sonraki analizler için her 10 ps'de bir kaydedilmiştir.
Yörünge analizi
Yörünge analizleri, üretim yörüngelerinin dengelenmiş bölümleri üzerinde gerçekleştirilmiştir. Protein ana zincir RMSD ve ligand RMSD değerleri, başlangıç referans konformasyonuna en küçük kareler yöntemiyle uydurulduktan sonra hesaplanmıştır. Kök ortalama kare dalgalanma (RMSF) değerleri, Cα atomları kullanılarak kalıntı bazında hesaplanmıştır. Her bir ligand ve reseptörü arasındaki hidrojen bağı analizi, 3.5 Å'lik bir donör-akseptör mesafe sınırı ve 30°'lik bir donör-hidrojen-akseptör açı sınırı kullanılarak yapılmıştır. Hidrojen bağı doluluğu, belirli bir hidrojen bağının mevcut olduğu analiz edilen karelerin oranı olarak tanımlanmıştır. Bu metrikler, üç MD yörüngesi boyunca yapısal kararlılığı, kalıntı düzeyindeki esnekliği ve moleküller arası etkileşimlerin kalıcılığını karakterize etmek için kullanılmıştır.
Moleküler mekanik Poisson-Boltzmann yüzey alanı (MM-PBSA) bağlanma serbest enerjisi hesaplaması
Bağlanma serbest enerjisi, MD yörüngelerinin dengelenmiş bölümleri üzerinde MM-PBSA analiz yazılımı ile uygulanan MM-PBSA yöntemi kullanılarak hesaplanmıştır35. Her bir protein-ligand kompleksi için, 150 ns'lik üretim yörüngesinin son 50 ns'lik kısmı serbest enerji analizi için kullanılmıştır. 100.0 ns ile 149.9 ns arasından, 100 ps aralıklarla toplam 500 eşit aralıklı kare örneklenmiş; 150.0 ns bitiş noktası örneklem setinin dışında tutulmuştur. Toplam bağlanma serbest enerjisi; van der Waals enerjisi, elektrostatik enerji, polar solvasyon enerjisi ve apolar solvasyon enerjisi terimlerinin toplamı olarak hesaplanmıştır:
ΔG_bind = ΔE_vdW + ΔE_ele + ΔG_polar + ΔG_nonpolar (1)
Entropi düzeltmesi uygulanmamıştır. Ortalama bağlanma serbest enerjileri ve standart sapmalar, örneklenen tüm kareler üzerinden hesaplanmıştır.
Tekrarlanabilirlik ve hesaplamalı doğrulama kontrolleri
Hedef tahmini, hastalık-hedef geri çağrımı ve kesişim analizi basamaklarında kullanılan tüm gen isimleri, alt analizlerden önce resmi insan gen sembollerine standart hale getirildi. Tüm reseptör-ligand çiftleri genelinde özdeş docking parametreleri korundu. Docking kurulumu, aynı arama ayarları ve önceden belirlenmiş <2.0 Å ağır atom RMSD kabul eşiği kullanılarak, ilgili ko-kristalize ligandın her bir reseptör cebine yeniden dock edilmesiyle teknik olarak kontrol edildi. Kristalografik MMP9–NFH kompleksi, katalitik Zn2⁺ ortamı için pozitif yapısal referans olarak tutulurken, SRC–Compound 6, SRC yörünge analizi için eşleşmiş tuzaklamayan karşılaştırıcı olarak hizmet etti. MD yörüngeleri, sonraki analizlere dahil edilmeden önce sıcaklık ve basınç kararlılığı ile anormal kutu hacmi kaymasının yokluğu açısından incelendi. Hesaplamalı tekrarlanabilirliği desteklemek amacıyla tüm giriş dosyaları, reseptör yapıları, ligand topoloji dosyaları, docking konfigürasyon dosyaları, MD parametre dosyaları ve MM-PBSA kare seçim kayıtları arşivlendi.
Sonuçlar
Bileşikle ilişkili hedeflerin öngörülmesi ve kesişen hedeflerin belirlenmesi
Bileşik 1–3'ün ters hedef tahmini 212 potansiyel insan hedefi ortaya çıkarmıştır. Paralel olarak, GeneCards üzerinden “lung cancer H1299” anahtar kelimesi ve 0,27'den büyük bir alaka skoru eşiği kullanılarak yapılan hastalık-hedef taraması, NSCLC ile ilişkili 188 hedef belirlemiştir. Bileşiklerle tahmin edilen hedefler ile hastalıkla ilişkili hedef havuzu arasındaki kesişim analizi, sonraki tüm analizler için saklanan 21 örtüşen hedef sağlamıştır. İki hedef seti arasındaki örtüşme Şekil 2'de gösterilmiştir. Bu sonuçlar, çalışmadaki bileşiklerin yaygın ve spesifik olmayan bir hedef alanı yerine, hastalıkla ilgili kısıtlı bir hedef alt kümesinde toplandığını göstermektedir.
Protein-protein etkileşim analizi ve temel hedeflerin taranması
Kesişen 21 hedef, bir PPI ağı oluşturmak amacıyla STRING'e aktarıldı. Ortaya çıkan ağ 21 düğüm ve 116 kenar içeriyordu. Ek Tablo 1'deki düğüm-derece değerlerinin toplamı 232'dir ve bu durum 116 yönsüz kenarla uyumludur. Bu orijinal ağ için merkeziyet değerleri hesaplanmıştır. Medyan derece 12 idi; derece ≥ 12 kriterinin uygulanmasıyla 13 aday belirlendi. Bu 13 aday arasında medyan arasılık merkeziyeti 0,031293 ve medyan yakınlık merkeziyeti 0,769231 idi. Arasılık merkeziyeti ≥ 0,031293 ile yakınlık merkeziyeti > 0,769231 kriterlerinin birlikte uygulanması sonucunda beş merkez (hub) adayına öncelik verildi: AKT1, EGFR, TNF, MMP9 ve SRC. Elde tutulan alt kümeler için gösterilen değerler, filtreleme sırasında aktarılan orijinal 21 düğümlü ağın merkeziyet metrikleridir; 13 düğümlü veya 5 düğümlü alt ağlar için yeniden hesaplanmamıştır. Ağ merkeziyetleri yalnızca sonraki yapı tabanlı değerlendirme için adayları sıralamak amacıyla kullanılmış olup, bu adayların bileşiklerin biyolojik hedefleri olduğuna dair bir kanıt olarak yorumlanmamalıdır. Ek Tablo 1, Ek Tablo 2 ve Ek Tablo 3 sırasıyla başlangıçtaki 21 düğümlü ağın, ilk tarama adımından sonra elde tutulan 13 adayın ve finaldeki beş merkez adayının metriklerini raporlamaktadır. Ardışık PPI ağı taraması ve finaldeki beş merkez aday Şekil 3A, Şekil 3B, Şekil 3C, ve Şekil 3D'de gösterilmiştir.
Gen Ontolojisi ve Kyoto Gen ve Genom Ansiklopedisi zenginleştirme analizi
Belirlenen 21 kesişen hedefin fonksiyonel zenginleştirme analizi, nominal p < 0.10 dahil etme kriterlerini karşılayan 121 KEGG yolak saptamıştır. En yüksek sıralamaya sahip 20 yolak Şekil 4A'da gösterilmektedir. Bunlar arasında endokrin direnç, kanser yolakları, kanserde proteoglikanlar, EGFR tirozin kinaz inhibitörü direnci ve ErbB sinyal yolu özellikle belirgindir. Bu yolaklar, NSCLC'de tümör proliferasyonu, sağkalım, invazyon ve tedavi direnci ile yakından ilişkilidir. Nominal p < 0.10 değerini karşılayan ve elde tutulan tüm 121 KEGG yolağına ait eksiksiz zenginleştirme istatistikleri Ek Tablo 4'te sunulmuştur.
GO zenginleştirme analizi, aynı nominal p < 0.10 dahil etme kriterini karşılayan 177 BP terimi, 29 CC terimi ve 61 MF terimini daha belirlemiştir. Her kategorideki en yüksek sıralamaya sahip 10 terim Şekil 4B, Şekil 4C, ve Şekil 4D'de gösterilmiştir. Baskın biyolojik süreçler arasında vasküler ilişkili düz kas hücresi proliferasyonunun pozitif regülasyonu, mitotik hücre döngüsünün G2/M geçişi, insülin benzeri büyüme faktörü reseptörü sinyali, protein fosforilasyonu, apoptozun negatif regülasyonu ve sinyal iletimi yer almıştır. Temel hücresel bileşen terimleri çekirdek, membran salı, fokal yapışma, plazma membranı ve kromozomun telomerik bölgesi olmuştur. Buna karşılık, Şekil 4D'de gösterilen en üst moleküler fonksiyon terimleri arasında protein kinaz aktivitesi, protein serin kinaz aktivitesi, ATP bağlanması, protein serin/treonin kinaz aktivitesi, protein tirozin kinaz aktivitesi, RNA polimeraz II CTD heptapeptid tekrar kinaz aktivitesi, kinaz aktivitesi, histon H2AXY142 kinaz aktivitesi, histon H3Y41 kinaz aktivitesi ve özdeş protein bağlanması yer almıştır. BP, CC ve MF için tam zenginleştirme istatistikleri Ek Tablo 5, Ek Tablo 6 ve Ek Tablo 7'de sunulmuştur. Birlikte değerlendirildiğinde, bu zenginleştirme sonuçları, kesişen hedef setinin NSCLC progresyonu ile ilgili sinyal iletimi, sağkalım regülasyonu ve onkojenik yanıt süreçlerinde yoğunlaştığını göstermektedir.
Metabolit-hedef komplekslerinin moleküler kenetlenme temelli önceliklendirmesi
Bileşik 4 ve Bileşik 5 ile ağ topolojisi tarafından önceliklendirilen beş protein arasında moleküler kenetleme gerçekleştirilmiştir. Tablo 1'de bildirilen değerler AutoDock Vina kenetleme skorlarıdır ve deneysel olarak ölçülmüş bağlanma serbest enerjileri değildir. Bileşik 5, MMP9 ile en uygun tekil skoru (-8,418 kcal·mol⁻1) üretmiş, bunu MMP9 ile Bileşik 4 (-7,840 kcal·mol⁻1) takip etmiştir. Bileşik 5 ayrıca AKT1 ve EGFR için Bileşik 4'ten daha uygun skorlar alırken; Bileşik 4, SRC (-6,549'a karşı -6,204 kcal·mol⁻1) ve TNF (-5,436'ya karşı -5,299 kcal·mol⁻1) için biraz daha uygun skorlar almıştır. Böylece, Bileşik 5 beş protein genelinde tek tip bir skor avantajı göstermemiştir. Kenetleme sonuçları, yalnızca daha ileri yapısal analizler için temsilci kompleksleri önceliklendirmek amacıyla kullanılmıştır.
Temsili kenetlenme konformasyonları Şekil 5'te gösterilmiştir. En üst sırada yer alan MMP9–Bileşik 5 etkileşim haritasında, gösterilen temaslar sırasıyla yaklaşık 3,0 Å ve 2,4 Å mesafelerle Ala417 ve Pro421 yakınında konumlanmıştır. Elde tutulan en iyi poz etkileşim haritasında doğrudan bir Bileşik 5-ZN2⁺ koordinasyonu belirtilmemiş olup; His401, Glu402, His405 veya His411 ile doğrudan temaslar gösterilmemiştir. Bu durum, His401, His405 ve His411'in katalitik ZN2⁺'yi sırasıyla 2,21, 2,23 ve 2,22 Å'da koordine ettiği ve ters-hidroksamat inhibitörü NFH'nin aynı ZN2⁺'yi iki oksijen atomu aracılığıyla 2,07 ve 2,38 Å'da koordine ettiği 1GKC kristalografik referansı ile zıtlık oluşturmaktadır. Elde tutulan etkileşim haritasında doğrudan Bileşik 5-ZN2⁺ koordinasyonu belirtilmediği için herhangi bir Bileşik 5-ZN2⁺ koordinasyon mesafesi atanmamıştır; bu durum, ölçülen bir metal ayrılma değeri olarak değil, elde tutulan haritada kanıtlanmış doğrudan koordinasyonun yokluğu olarak yorumlanmıştır. MMP9–NFH kristalografik referansı ile yapılan üç boyutlu karşılaştırma Ek Şekil 1'de gösterilmiştir. Bu nedenle geometri, kanonik bir çinko bağımlı inhibitör bağlanma modundan farklıdır ve mevcut kenetlenme sonucu, Bileşik 5'in bir MMP9 inhibitörü olarak sınıflandırılmasını desteklememektedir. MMP9, yalnızca bu spesifik kanonik olmayan kenetlenme geometrisinin trajektör boyunca devam edip etmediğini belirlemek amacıyla MD analizi için tutulmuştur. Diğer kompleksler için Bileşik 5, AKT1 ve SRC ile öngörülen temaslar göstermiş, Bileşik 4 ise MMP9 ve SRC ile tanımlanmış kenetlenme etkileşimleri oluşturmuştur. Şekil 5F ile tutarlı olarak, bu gözlemler deneysel olarak doğrulanmış afiniteleri değil, öngörülen etkileşimleri ve bağıl kenetlenme skorlarını tanımlamaktadır.
Doğrulamadan ziyade karşılaştırma amacıyla MD analizi için üç kompleks seçilmiştir. MMP9–Bileşik 5, en uygun tekil kenetlenme skoruna sahip olması ancak dikkatli yapısal takip gerektiren kanonik olmayan bir MMP9 pozuna sahip olması nedeniyle seçilmiştir. SRC–Bileşik 5 ikinci aday kompleks olarak seçilmiş ve SRC–Bileşik 6, eşleşmiş tuzaklama yapmayan kontrol trajektorisi olarak dahil edilmiştir. İlgili başlangıç konformasyonları Şekil 6A, Şekil 6B, ve Şekil 6C'de gösterilmektedir. Bu tasarım, MD stabilitesini hedef etkileşimi veya fonksiyonel düzenleme kanıtı olarak değerlendirmeden, seçilen kenetlenme geometrilerinin kalıcılığının karşılaştırılmasına olanak sağlamıştır.
Moleküler dinamik analizi
Seçilen kenetlenme kaynaklı geometrilerin dinamik sulu koşullar altındaki kalıcılığını karşılaştırmak için, MMP9–Bileşik 5 ve SRC (PDB 2H8H)–Bileşik 5 kompleksleri için 150 ns MD yörüngeleri oluşturulmuş ve eşleştirilmiş negatif kontrol yörüngesi olarak SRC (PDB 2H8H)–Bileşik 6 dahil edilmiştir. Başlangıç konformasyonları Şekil 6A, Şekil 6B, ve Şekil 6C'de gösterilmektedir. Bu yörüngeler boyunca, Bileşik 5, MMP9 ve SRC sistemlerinde, SRC'deki Bileşik 6'ya kıyasla daha düşük ligand RMSD (Şekil 6D) göstermiştir. MMP9–Bileşik 5 yörüngesi nispeten düşük bir dalgalanma rejimine ulaşmış, SRC–Bileşik 5 yörüngesi başlangıçtaki bir uyum sürecinden sonra stabilize olmuş ve SRC–Bileşik 6 yörüngesi daha büyük dalgalanmalar göstermiştir. Bu farklar, seçilen Bileşik 5 kenetlenme pozlarının MD sırasında daha yüksek kalıcılığa sahip olduğunu göstermektedir. Bunlar, Bileşik 5'in hücrelerde MMP9 veya SRC'ye bağlandığını kanıtlamaz ve MMP9 yörüngesi, başlangıç pozundaki kanonik katalitik-ZN2⁺ etkileşiminin yokluğunu gidermez.
Protein omurgası RMSD'si benzer bir karşılaştırmalı model sergilemiştir. MMP9–Bileşik 5 yörüngesi yaklaşık 30 ns sonra nispeten kararlı bir omurga rejimine girmişken, SRC–Bileşik 5 yörüngesi daha geç bir platoya ulaşmış ve SRC–Bileşik 6 yörüngesi daha büyük dalgalanmalar göstermiştir. Bu gözlemler yalnızca yörünge davranışını tanımlamaktadır. Kararlı bir protein omurgası veya ligand yörüngesi; hücre içi hedef doluluğunu, enzim inhibisyonunu veya sinyal modülasyonunu kanıtlayamaz. Her üç sistem için protein omurgası RMSD profilleri Ek Şekil 2'de sunulmuştur.
Yörünge analizi
MD yörüngelerindeki temas kalıcılığını tanımlamak için hidrojen bağı doluluk oranı ve kalıntı dalgalanma analizleri kullanılmıştır (Şekil 7A). Bileşik 5, MMP9 yörüngesinde Arg95 ile yüksek doluluk oranlı bir hidrojen bağı (>85%) ve SRC yörüngesinde Leu325 ile tekrarlayan bir etkileşim (>70%) gösterirken, SRC–Bileşik 6 kontrolündeki temsili temaslar daha düşük doluluk oranlarına sahiptir. Bu kalıntılar, fonksiyonel hedef modülasyonunun kanıtı olarak sunulmamıştır; doluluk değerleri yalnızca belirlenen temasların analiz edilen yörüngeler boyunca ne sıklıkla gerçekleştiğini göstermektedir.
Bağlanma cebi kalıntılarının RMSF analizi, lokal esneklikte sisteme özgü farklılıklar olduğunu göstermiştir (Şekil 7B). SRC–Bileşik 6 yörüngesi, SRC–Bileşik 5 yörüngesine kıyasla birkaç daha büyük lokal dalgalanma sergilemiş; MMP9–Bileşik 5 yörüngesi ise kendi bağlanma cebi kalıntı seti içinde nispeten daha kısıtlı bir dalgalanma profili göstermiştir. MMP9 ve SRC farklı proteinler olduğundan, kalıntı düzeyindeki RMSF değerleri doğrudan kalıntı bazlı bir karşılaştırma olarak yorumlanmamıştır. Hidrojen bağı doluluğu ile birlikte bu sonuçlar, temas kalıcılığını ve lokal esnekliği karakterize ederek, komplekslerin deneysel testler için önceliklendirilmesine yardımcı olur. Bu sonuçlar, MMP9 veya SRC'yi hücre içi hedefler olarak tanımlamaz veya her iki proteinin bileşiklerin antikanser fenotipini aracı kıldığını kanıtlamaz.
Moleküler mekanik Poisson-Boltzmann yüzey alanı bağlanma serbest enerjisi hesaplaması
Dengelenmiş yörünge segmentlerinden hesaplanan MM-PBSA tahminleri Şekil 8'de gösterilmiştir. MMP9–Bileşik 5 kompleksi -19.65 ± 6.43 kcal·mol⁻1 değerinde bir ΔG_bind tahmini verirken, SRC–Bileşik 5 kompleksi -17.72 ± 6.84 kcal·mol⁻1 ve SRC–Bileşik 6 kontrolü -10.37 ± 5.61 kcal·mol⁻1 değerlerini vermiştir. Bu hesaplama protokolü dahilinde, göreceli enerjik sıralama sırasıyla MMP9–Bileşik 5, ardından SRC–Bileşik 5 ve SRC–Bileşik 6 şeklinde gerçekleşmiştir. Bu değerler, sınırlı bir yörünge segmentinden türetilen yönteme bağlı tahminlerdir ve herhangi bir entropi düzeltmesi uygulanmamıştır. Bu nedenle, yalnızca çalışma içi karşılaştırmalar için kullanılmışlardır ve deneysel olarak ölçülmüş bağlanma afiniteleri veya fonksiyonel protein modülasyonunun kanıtı olarak yorumlanmamalıdırlar.
Kenetlenme, MD, temas-doluluk, kalıntı-dalgalanma ve MM-PBSA analizleri genelinde, Bileşik 5, MMP9 ve SRC komplekslerinde takip için hesaplamalı olarak önceliklendirilmiştir. Bu hesaplamalar arasındaki yakınsama, bu çiftlerin sonraki deneyler için seçilme gerekçesini güçlendirmektedir; ancak MMP9 veya SRC'nin doğrudan hücre içi hedefler olduğu sonucunu doğrulamamaktadır. Özellikle, standart dışı MMP9 pozu ve kanıtlanmış katalitik ZN2⁺ koordinasyonunun yokluğu, mevcut yapısal verilerden standart bir MMP9 inhibisyon mekanizmasının çıkarılmasını engellemektedir.
Sonuçlardan çıkarılan değerlendirmeler
Hesaplamalı iş akışı, birbiriyle örtüşen 21 hastalıkla ilişkili hedefi önceliklendirmiş ve AKT1, EGFR, TNF, MMP9 ve SRC'yi topolojik merkez adayları olarak tanımlamıştır. Yapı tabanlı analizler, MMP9 ve SRC komplekslerinde deneysel takipleri için Bileşik 5'i daha öncelikli hale getirmiştir. Bu bulgular; doğrudan hedef etkileşimini, MMP9 veya SRC inhibisyonunu, yolak regülasyonunu veya protein etkileşimleri ile daha önce belirlenmiş olan abazik bölge tuzaklama etkisi arasındaki nedensel mekanistik bir bağlantıyı kanıtlamamaktadır. Bu nedenle çalışma, deneysel olarak kanıtlanmış çok hedefli bir anti-NSCLC mekanizmasından ziyade, test edilebilir bir dizi hesaplamalı hipotezi desteklemektedir.
VERİLERİN ERİŞİLEBİLİRLİĞİ:
Bu çalışmanın bulgularını destekleyen veri seti, Wang X, Peng Z, Xing Y, Xue L. In silico prioritization of potential protein interactions for glutathione-responsive abasic site-trapping prodrugs in non-small cell lung cancer [dataset]. Figshare; 2026. doi:10.6084/m9.figshare.33313620.v1. adresinde kamuya açık olarak sunulmaktadır.
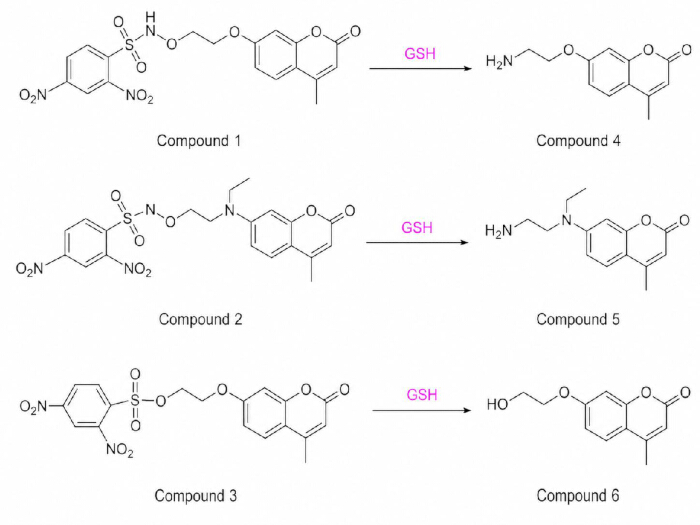
Şekil 1: Çalışılan bileşiklerin kimyasal yapıları ve glutatyon tetiklemeli dönüşüm ilişkileri. Bileşik 1 ve Bileşik 2, sırasıyla aminooksi içeren metabolitler olan Bileşik 4 ve Bileşik 5'i salan glutatyon duyarlı ön ilaçlardır. Bileşik 3, aminooksi abazik-saha-yakalama işlevselliğinden yoksun olan Bileşik 6'yı oluşturan, eşleştirilmiş glutatyon duyarlı bir yapısal kontroldür. Bileşik 1–3 ters hedef tahmini için, Bileşik 4 ve Bileşik 5 hub-hedef kenetlenmesi için ve Bileşik 6 SRC moleküler dinamik karşılaştırmasında negatif kontrol ligandı olarak kullanılmıştır. Kısaltmalar: SRC, SRC proto-onkogen, reseptör dışı tirozin kinaz. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
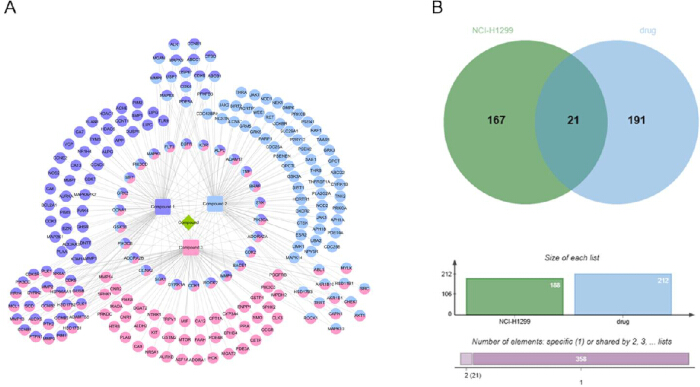
Şekil 2: Bileşiklerle öngörülen hedefler ile küçük hücreli dışı akciğer kanseri ile ilişkili hedeflerin kesişimi. (A) Bileşik 1–3 için ters hedef öngörü sonuçlarından oluşturulan bileşik-hedef ağı. (B) Bileşiklerle öngörülen hedefler ile H1299 akciğer kanseri sorgusu kullanılarak elde edilen hastalıkla ilişkili hedefler arasındaki örtüşmeyi gösteren Venn diyagramı. Kesişen 21 hedef; protein-protein etkileşim analizi, zenginleştirme analizi ve sonraki yapı tabanlı önceliklendirme için saklanmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
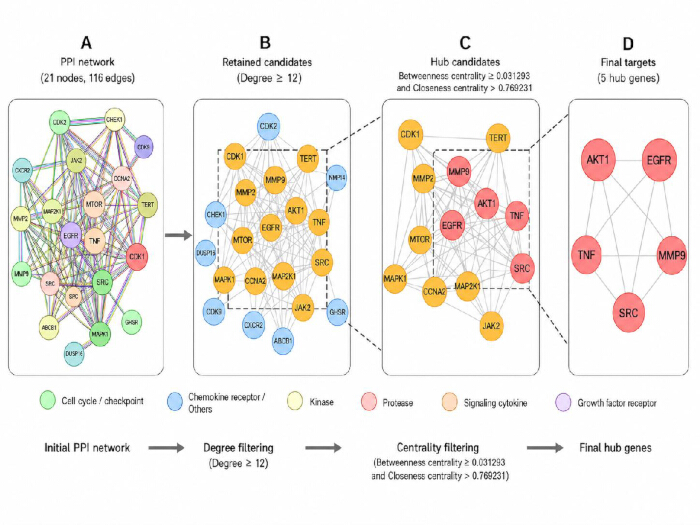
Şekil 3: Protein-protein etkileşim ağı ve temel hedef taraması. (A) Kesişen 21 hedefin protein-protein etkileşim ağı (116 kenar). (B) 13 adayı belirleyen, Derece ≥ 12 kullanılan ilk tarama adımı. (C) Arasındaki merkeziyet (betweenness centrality) ≥ 0,031293 ve yakınlık merkeziyeti (closeness centrality) > 0,769231 kullanılarak belirlenen 13 adayın ikinci taraması sonucunda elde edilen beş hub adayı. (D) Nihai beş hub adayı: AKT1, EGFR, TNF, MMP9 ve SRC. Ardışık filtreler için kullanılan merkeziyet değerleri, orijinal 21 düğümlü ve 116 kenarlı ağ üzerinden hesaplanmış ve her alt küme oluşturulduğunda yeniden hesaplanmak yerine doğrudan aktarılmıştır. Kısaltmalar: AKT1, AKT serin/treonin kinaz 1; EGFR, epidermal büyüme faktörü reseptörü; TNF, tümör nekroz faktörü; MMP9, matriks metalloproteinaz 9; SRC, SRC proto-onkogen, reseptör dışı tirozin kinaz. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
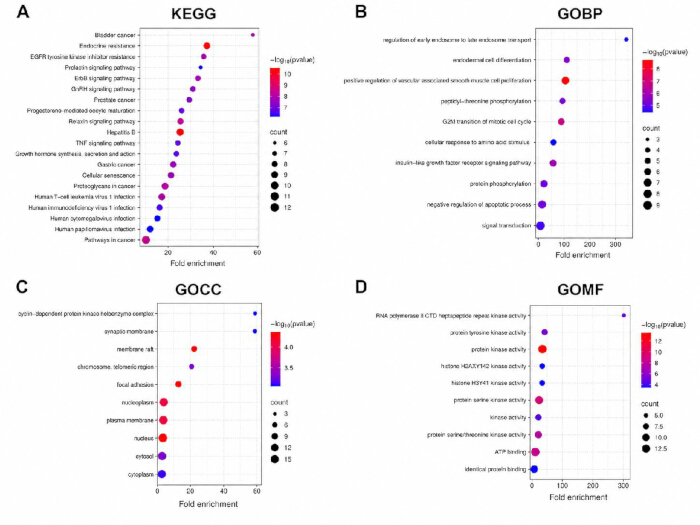
Şekil 4: Kesişen hedeflerin fonksiyonel zenginleştirme analizi. (A) En zenginleşmiş ilk 20 Kyoto Encyclopedia of Genes and Genomes yolağına ait balon grafiği. (B) En zenginleşmiş ilk 10 Gene Ontology biyolojik süreç teriminin sütun grafiği. (C) En zenginleşmiş ilk 10 Gene Ontology hücresel bileşen teriminin sütun grafiği. (D) En zenginleşmiş ilk 10 Gene Ontology moleküler fonksiyon teriminin sütun grafiği. Son görselleştirmede x-ekseninde kat zenginleştirme (fold enrichment) gösterilmektedir; A panelindeki balon boyutu gen sayısını yansıtmaktadır. Ek Tablo 4–7'de yer alan tüm temel KEGG ve GO girdileri, nominal p < 0.10 dahil etme kriterini karşılamıştır; grafiğe dökülen yolaklar/terimler, nominal p-değerine göre en yüksek sıralamaya sahip olanlardır. Çoklu test düzeltmeli değerler ek tablolarda rapor edilmiştir ancak dahil etme işlemi için kullanılmamıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
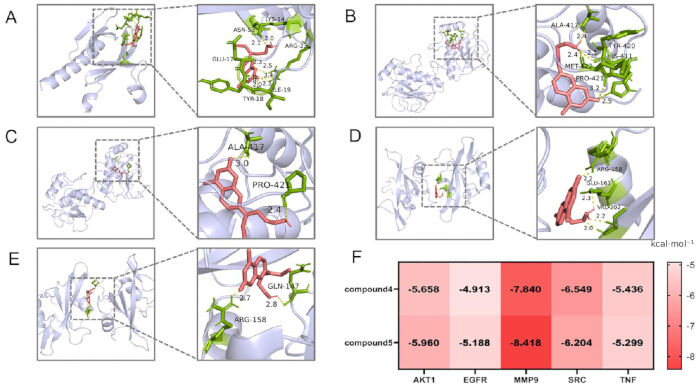
Şekil 5: Bileşik 4 ve Bileşik 5'in önceliklendirilmiş proteinlerle moleküler kenetlenme pozları ve AutoDock Vina skorları. (A) Bileşik 5'in AKT1 ile öngörülen kenetlenme pozu. (B) Bileşik 4'ün MMP9 ile öngörülen kenetlenme pozu. (C) Bileşik 5'in MMP9 ile en üst sırada yer alan öngörülen pozu; gösterilen temaslar Ala417 ve Pro421 yakınlarındadırken, doğrudan katalitik ZN2⁺ koordinasyonu veya His401, Glu402, His405 veya His411 ile doğrudan temas belirtilmemiştir. Bu nedenle poz, kanonik bir MMP9 inhibe edici bağlanma modu olarak sunulmamıştır. Kristalografik ZN2⁺ koordinasyon mesafelerini içeren, NFH-bağlı MMP9 kristal yapısı (PDB 1GKC) ile referans etkileşim haritası karşılaştırması Ek Şekil 3'te verilmiştir. (D) Bileşik 4'ün SRC ile öngörülen kenetlenme pozu. (E) Bileşik 5'in SRC ile öngörülen kenetlenme pozu. (F) Bileşik 4 ve Bileşik 5'in beş önceliklendirilmiş proteine karşı AutoDock Vina kenetlenme skorlarının (kcal·mol⁻1) ısı haritası. Daha negatif değerler, bu kenetlenme protokolü dahilinde daha elverişli Vina skorlarını belirtir; bunlar deneysel olarak ölçülmüş bağlanma afiniteleri değildir. Kısaltmalar: AKT1, AKT serin/treonin kinaz 1; MMP9, matriks metalloproteinaz 9; NFH, N2-[(2R)-2-{[formil(hidroksi)amino]metil}-4-metilpentanoil]-N,3-dimetil-L-valinamid; SRC, SRC proto-onkogen, reseptör olmayan tirozin kinaz; PDB, Protein Veri Bankası; Ala, alanin; Pro, prolin; His, histidin; ve Glu, glutamat. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
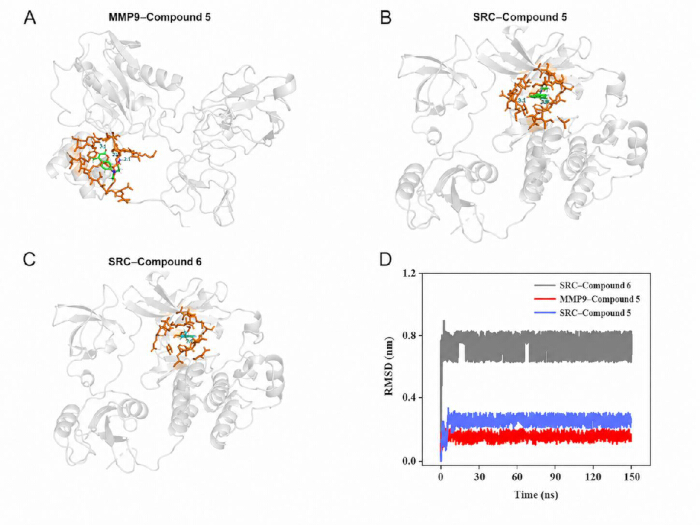
Şekil 6: MD komplekslerinin yapısal genel görünümü ve ligand kararlılık analizi. (A) MD için başlangıç yapısı olarak kullanılan Bileşik 5'in MMP9 ile ilk kenetlenme konformasyonu. (B) Bileşik 5'in SRC (PDB 2H8H) ile ilk kenetlenme konformasyonu. (C) Bileşik 6'nın SRC (PDB 2H8H) ile ilk kenetlenme konformasyonu; Bileşik 6, kontrol Bileşiği 3'ün glutatyon ile parçalanma ürünüdür ve aminooksi abazik-saha-tuzaklama fonksiyonuna sahip değildir. (D) MMP9–Bileşik 5, SRC–Bileşik 5 ve SRC–Bileşik 6 için 150 ns trajektörleri boyunca başlangıç kenetlenme pozuna göre ligand kök ortalama kare sapması. Panel, MD sırasındaki poz kalıcılığını karşılaştırmaktadır ve hücre içi hedef etkileşimini kanıtlamamaktadır. Kısaltmalar: MD, moleküler dinamik; MMP9, matriks metalloproteinaz 9; SRC, SRC proto-onkogen, reseptör olmayan tirozin kinaz; PDB, Protein Veri Bankası; RMSD, kök ortalama kare sapma. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
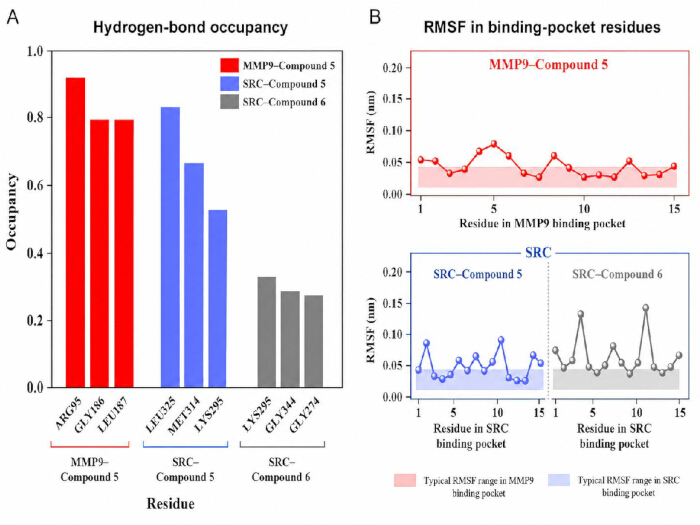
Şekil 7: Moleküler dinamik analizi sırasındaki dinamik etkileşim özellikleri. (A) MMP9–Bileşik 5, SRC–Bileşik 5 ve SRC–Bileşik 6 için 150 ns'lik trajektörler boyunca temsili ligand-protein hidrojen bağlarının doluluk oranları. (B) Bağlanma cebi kalıntılarının ortalama kare sapma dalgalanması (RMSF). MMP9 profili MMP9 sistemi dahilinde yorumlanmışken, SRC–Bileşik 5 ve SRC–Bileşik 6 profilleri SRC içinde doğrudan eşleştirilmiş karşılaştırma sağlamaktadır. Bu analizler, MD sırasındaki temas kalıcılığını ve yerel esnekliği tanımlar; MMP9 veya SRC'nin hücre içi hedef etkileşimini veya fonksiyonel modülasyonunu kanıtlamaz. Kısaltmalar: MD, moleküler dinamik; MMP9, matris metalloproteinaz 9; SRC, SRC proto-onkogen, reseptör olmayan tirozin kinaz; RMSF, ortalama kare sapma dalgalanması. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
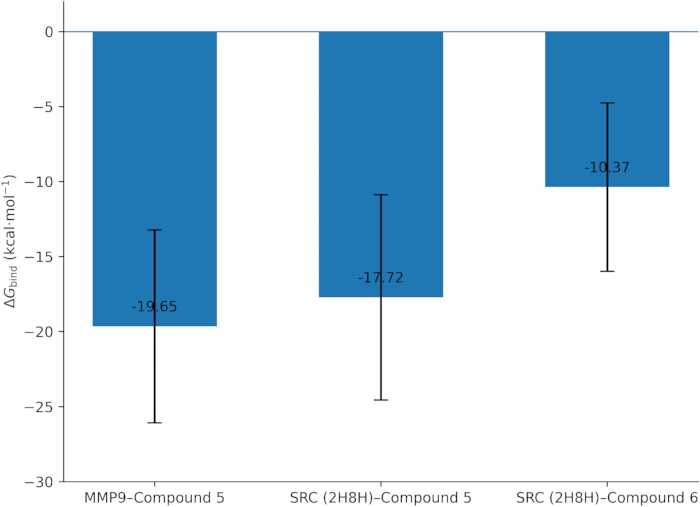
Şekil 8: Analiz edilen kompleksler için moleküler mekanik Poisson-Boltzmann yüzey alanı enerjik tahminleri. MMP9–Bileşik 5, SRC (PDB 2H8H)–Bileşik 5 ve SRC (PDB 2H8H)–Bileşik 6 komplekslerinin dengelenmiş trajektori segmentlerinden moleküler mekanik Poisson-Boltzmann yüzey alanı yöntemiyle elde edilen tahmini ΔG_bind değerleri. Değerler ortalama ± standart sapma olarak sunulmuştur ve deneysel olarak ölçülen bağlanma afiniteleri yerine çalışma içi göreceli karşılaştırma için kullanılmıştır. Şekil 8, Yöntemler ve Sonuçlar bölümlerinde kullanılan denklem ve terminolojiyle tutarlı olarak y-ekseni etiketi olarak ΔG_bind (kcal·mol⁻1) kullanmaktadır. Kısaltmalar: MMP9, matris metalloproteinaz 9; SRC, SRC proto-onkogen, reseptör olmayan tirozin kinaz; PDB, Protein Veri Bankası; ΔG_bind, bağlanma serbest enerjisi; MM-PBSA, moleküler mekanik Poisson–Boltzmann yüzey alanı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Bileşik | AKT1 (kcal·mol⁻¹) | EGFR (kcal·mol⁻¹) | MMP9 (kcal·mol⁻¹) | SRC (kcal·mol⁻¹) | TNF (kcal·mol⁻¹) |
| Bileşik 4 | -5.658 | -4.913 | -7.840 | -6.549 | -5.436 |
| Bileşik 5 | -5.960 | -5.188 | -8.418 | -6.204 | -5.299 |
Tablo 1: Öncelikli beş proteine karşı Bileşik 4 ve Bileşik 5'in AutoDock Vina kenetlenme skorları. AKT1, EGFR, MMP9, SRC ve TNF ile Bileşik 4 ve Bileşik 5 için AutoDock Vina kenetlenme skorları (kcal·mol⁻1). Belirlenen kenetlenme protokolü dahilinde daha negatif değerler, daha elverişli skorları ifade eder. Bu değerler hesaplamalı skorlardır ve deneysel olarak ölçülmüş bağlanma serbest enerjileri veya afiniteleri olarak tanımlanmamalıdır. Kısaltmalar: AKT1, AKT serin/treonin kinaz 1; EGFR, epidermal büyüme faktörü reseptörü; MMP9, matriks metalloproteinaz 9; SRC, SRC proto-onkogen, reseptör olmayan tirozin kinaz; TNF, tümör nekroz faktörü.
Ek Şekil 1: MMP9–NFH kristalografik referansı ile en üst sırada yer alan MMP9–Bileşik 5 docking pozunun yapısal karşılaştırması.(A) MMP9–NFH referans kompleksinin (PDB 1GKC) katalitik ZN2⁺ ortamı; His401, His405, His411, Glu402 ve gösterilen NFH koordinasyon mesafelerini göstermektedir. (B) Gösterilen Ala417 ve Pro421 temaslarını içeren en üst sırada yer alan Bileşik 5 docking pozu. (C) Aynı Bileşik 5 docking pozunun alternatif üç boyutlu görünümü. Karşılaştırma, yapısal bir referans olarak sunulmuştur ve MMP9 inhibisyonunu kanıtlamaz. Kısaltmalar: MMP9, matriks metalloproteinaz 9; NFH, N2-[(2R)-2-{[formil(hidroksi)amino]metil}-4-metilpentanoil]-N,3-dimetil-L-valinamid; PDB, Protein Veri Bankası; Ala, alanin; Pro, prolin; His, histidin; Glu, glutamat.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 2: Moleküler dinamik analizi sırasında protein omurgası kare ortalama kare sapması. Tüm moleküler dinamik yörüngeleri boyunca MMP9–Bileşik 5, SRC (PDB 2H8H)–Bileşik 5 ve SRC (PDB 2H8H)–Bileşik 6 sistemleri için protein omurgası kare ortalama kare sapma profilleri. Son grafik, eksenleri RMSD (nm) ve Zaman (ns) olarak bildirilen MMP9–Bileşik 5, SRC–Bileşik 5 ve SRC–Bileşik 6 standart etiketlerini kullanmaktadır. Profiller, MD sırasındaki zamana bağlı konformasyonel davranışı tanımlamaktadır ve hücresel bağlanma veya protein düzenlemesi kanıtı olarak yorumlanmamalıdır. Kısaltmalar: MMP9, matriks metalloproteinaz 9; SRC, SRC proto-onkogen, reseptör olmayan tirozin kinaz; PDB, Protein Veri Bankası; RMSD, kare ortalama kare sapma; MD, moleküler dinamik.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 3: 1GKC-NFH referans kompleksi ile en üst sırada yer alan Bileşik 5 kenetlenme pozundaki MMP9 katalitik ZN2⁺ ortamının karşılaştırılması. Kristalografik MMP9–NFH referans kompleksinde (PDB 1GKC), His401, His405 ve His411, katalitik ZN2⁺'yi sırasıyla 2.21, 2.23 ve 2.22 Å mesafelerinde koordine eder ve iki NFH oksijen atomu ZN2⁺'yi 2.07 ve 2.38 Å mesafelerinde koordine eder; Glu402 katalitik asit/baz kalıntısıdır. Buna karşılık, elde tutulan en üst sırada yer alan Bileşik 5 etkileşim haritası, Ala417 (3.0 Å) ve Pro421 (2.4 Å) ile temaslar göstermekte ancak belirtilmiş doğrudan bir ZN2⁺ koordinasyonu veya His401, Glu402, His405 veya His411 ile doğrudan temaslar göstermemektedir. Buna bağlı olarak, herhangi bir Bileşik 5-ZN2⁺ koordinasyon mesafesi atanmamıştır. Bu karşılaştırma, Bileşik 5 pozunun kanonik bir çinko bağımlı inhibitör bağlanma modundan ziyade, kanonik olmayan öngörülen bir ilişki olarak sınıflandırılmasını desteklemektedir. Kısaltmalar: MMP9, matriks metalloproteinaz 9; PDB, Protein Veri Bankası; Ala, alanin; Pro, prolin; His, histidin; Glu, glutamat.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 1: Başlangıçtaki 21 düğümlü, 116 kenarlı protein-protein etkileşim ağına ait topolojik metrikler. Ortalama en kısa yol uzunluğu, arasındalık merkeziliği, yakınlık merkeziliği, kümelenme katsayısı, derece, eksantrisite, komşuluk bağlantılılığı, radyalite, stres ve topolojik katsayı dahil olmak üzere, merkezilik tabanlı tarama öncesindeki tüm 21 kesişen hedef düğümün topolojik parametreleri. Düğüm derecelerinin toplamı, 116 yönsüz kenara karşılık gelen 232'dir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 2: Derece tabanlı tarama sonrası elde tutulan 13 aday için orijinal ağ topolojik metrikleri. İlk 21 düğümlü ve 116 kenarlı ağa derece kriteri uygulandıktan sonra elde tutulan 13 düğüm için topolojik parametreler. Bu değerler, sonraki arasılık ve yakınlık merkeziliği filtreleme adımı için aktarılan orijinal 21 düğümlü, 116 kenarlı ağ metrikleridir; 13 düğümlü bir alt ağ üzerinde yeniden hesaplanmamışlardır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 3: Ardışık filtreleme sonrası korunan son beş hub adayı için orijinal ağ topolojik metrikleri. Ardışık filtreleme sonrası korunan son beş hub adayı olan AKT1, EGFR, TNF, MMP9 ve SRC için orijinal 21 düğümlü, 116 kenarlı ağ topolojik parametreleri. Bu aktarılan değerler yalnızca ağ tabanlı önceliklendirmeyi destekler ve beş düğümlü bir alt ağ üzerinde yeniden hesaplanmış metrikleri temsil etmez veya proteinlerin deneysel olarak doğrulanmış ilaç hedefleri olduğunu kanıtlamaz. Kısaltmalar: AKT1, AKT serin/treonin kinaz 1; EGFR, epidermal büyüme faktörü reseptörü; TNF, tümör nekroz faktörü; MMP9, matriks metalloproteinaz 9; SRC, SRC proto-onkogeni, reseptör olmayan tirozin kinaz.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 4: Nominal p < 0,10 dahil etme kriterini karşılayan 121 yolak için tam Kyoto Encyclopedia of Genes and Genomes zenginleştirme sonuçları. Kesişen 21 hedef arasından seçilen tüm 121 yolak için; gen oranı, gen sayıları, liste toplamları, popülasyon hitleri, popülasyon toplamları, p-değerleri, Benjamini değerleri, kat zenginleştirme, Bonferroni değerleri, yanlış keşif oranları ve Fisher'ın kesin test değerlerini içeren tam Kyoto Encyclopedia of Genes and Genomes zenginleştirme istatistikleri (nominal p < 0,10). En yüksek sıralamaya sahip 20 yolak Şekil 4A'de görselleştirilmiştir. Dahil etme kriteri olarak nominal p-değeri tanımlanmıştır; şeffaflık adına Benjamini, Bonferroni ve yanlış keşif oranı değerleri raporlanmış olup, seçilen seti tanımlamak için kullanılmamıştır.Bu dosyayı indirmek için lütfen buraya tıklayınız.
Ek Tablo 5: Tam Gen Ontolojisi biyolojik süreç zenginleştirme sonuçları (nominal p < 0.10 kriterini karşılayan 177 terim). Gen oranı, gen sayısı, liste toplamı, popülasyon hitleri, popülasyon toplamı, p-değeri, Benjamini değeri, kat zenginleşme (fold enrichment), Bonferroni değeri, yanlış keşif oranı ve Fisher'ın kesin test değeri dahil olmak üzere, korunan tüm 177 Gen Ontolojisi biyolojik süreç terimi (nominal p < 0.10) için tam zenginleştirme istatistikleri. En yüksek sıralamaya sahip 10 terim Şekil 4B'de görselleştirilmiştir. Dahiliyet nominal p-değeri kriteri ile tanımlanmıştır; düzeltilmiş değerler şeffaflık amacıyla raporlanmış olup korunan seti tanımlamak için kullanılmamıştır.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 6: Tam Gen Ontolojisi hücresel bileşen zenginleştirme sonuçları (nominal p < 0.10 olan 29 terim). Gen oranını, gen sayısını, liste toplamını, popülasyon hitlerini, popülasyon toplamını, p-değerini, Benjamini değerini, kat zenginleştirmeyi, Bonferroni değerini, yanlış keşif oranını ve Fisher'ın kesin test değerini içeren, tutulan tüm 29 Gen Ontolojisi hücresel bileşen terimi (nominal p < 0.10) için tam zenginleştirme istatistikleri. En yüksek sıralamaya sahip 10 terim Şekil 4C'de görselleştirilmiştir. Dahil edilme kriteri olarak nominal p-değeri tanımlanmıştır; düzeltilmiş değerler şeffaflık amacıyla raporlanmış olup tutulan seti tanımlamak için kullanılmamıştır.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 7: Tam Gen Ontolojisi moleküler fonksiyon zenginleştirme sonuçları (nominal p < 0.10 olan 61 terim). Gen oranı, gen sayısı, liste toplamı, popülasyon hitleri, popülasyon toplamı, p-değeri, Benjamini değeri, kat zenginleştirme, Bonferroni değeri, yanlış keşif oranı ve Fisher'ın kesin testi değeri dahil olmak üzere, korunan tüm 61 Gen Ontolojisi moleküler fonksiyon terimi (nominal p < 0.10) için tam zenginleştirme istatistikleri. En yüksek sıralamaya sahip 10 terim Şekil 4D'de görselleştirilmiştir. Dahil edilme kriteri olarak nominal p-değeri tanımlanmıştır; düzeltilmiş değerler şeffaflık adına raporlanmış olup korunan seti tanımlamak için kullanılmamıştır.Lütfen bu dosyayı indirmek için buraya tıklayın.
Tartışma
Mevcut çalışma, iki seviyeli mekanistik bir çerçeve kapsamında yorumlanmalıdır. İlk seviye, önceki deneysel çalışmalarla desteklenmektedir: glutatyon duyarlı aktivasyon, aldehitik abazik bölgeleri yakalayabilen aminooksi içeren bir türün salınımını sağlar ve bu bileşik sınıfı H1299 hücrelerinde seçici sitotoksisite, hücre döngüsü etkileri ve apoptoz göstermiştir. İkinci seviye ise keşifseldir ve mevcut çalışmanın odak noktasını oluşturmaktadır: bilgisayarlı hedef tahmini ve yapı tabanlı analizler, aynı kimyasal serinin seçili kanser ilişkili proteinlerle de uyumlu olabileceğini öne sürmektedir. Bu çalışmadaki hiçbir deney, tahmin edilen protein etkileşimlerinin hücrelerde gerçekleştiğini veya bunların abazik bölge yakalanmasının alt akış sonuçları olduğunu kanıtlamamaktadır. Bu nedenle, iki seviye, kanıtlanmış çok hedefli bir mekanizma şeklinde birleştirilmek yerine bilinçli olarak ayrı tutulmuştur.
Ağ düzeyinde, kesişen 21 hedef, kanser ve dirençle ilişkili yolaklarda zenginleşmişti; AKT1, EGFR, TNF, MMP9 ve SRC ise PPI ağında merkezi konumlarda yer almaktaydı. Bu sonuçlar aday önceliklendirmesi için faydalıdır, ancak ağ merkeziliği ve zenginleştirme, bir bileşiğin bir proteine fiziksel olarak bağlandığını veya bir yolağı değiştirdiğini kanıtlayamaz. Bu nedenle, hub proteinler hedeflenen doğrulama için aday olarak değerlendirilmelidir. Fonksiyonel bir rolun belirlenmesi, hücresel fenotipi ölçmek için kullanılan aynı NSCLC hücre hattında doğrudan perturbasyon veya hedef etkileşimi deneyleri gerektirecektir.
MMP9, bu ayrımın neden önemli olduğunu göstermektedir. Bileşik 5, MMP9 ile en uygun tekil kenetlenme skoruna sahipti, ancak elde tutulan en iyi poz etkileşim haritası, katalitik Zn2+ iyonunun doğrudan koordinasyonunu veya His401, Glu402, His405 veya His411'in doğrudan etkileşimini belirtmemiştir. 1GKC kristalografik referansında His401, His405 ve His411; Zn2+ iyonunu sırasıyla 2.21, 2.23 ve 2.22 Å mesafelerinde koordine ederken, iki NFH oksijen atomu Zn2+ iyonunu 2.07 ve 2.38 Å mesafelerinde koordine etmektedir; Glu402 ise katalitik asit/baz kalıntısıdır. Bileşik 5 haritası ise bunun yerine Ala417 ve Pro421 yakınındaki temasları göstermiştir. Ek Şekil 3, referans etkileşim haritası karşılaştırmasını sunmaktadır. Doğrudan Bileşik 5-Zn2+ koordinasyonu belirtilmediği için, herhangi bir Bileşik 5-Zn2+ koordinasyon mesafesi atanmamıştır. Buna bağlı olarak, mevcut yapısal sonuç, katalitik bölge inhibisyonu kanıtı olarak değil, MMP9 ile kanonik olmayan öngörülen bir ilişki olarak tanımlanmaya daha uygundur. Sonraki MD yörüngesi yalnızca bu spesifik kenetlenme pozunun zamanla kalıcı olup olmadığını test eder; kanonik olmayan bir kenetlenme geometrisini enzimatik inhibisyon kanıtına dönüştüremez36,37. Bu nedenle MMP9, temel veya doğrulanmış bir hedeften ziyade biyokimyasal testler için bir aday olarak kalmalıdır. MMP9; kanser invazyonu, tümör mikroçevre yeniden şekillenmesi ve MMP9 hedefli terapötik stratejilerle ilişkili olarak yaygın şekilde tartışılmıştır38,39.
Aynı kanıtsal sınır SRC için de geçerlidir. SRC–Bileşik 5 yörüngesi, SRC–Bileşik 6 kontrolüne göre daha kalıcı temaslar sergilemiş olsa da, MD stabilitesi hücre içi hedef doluluğu ile eş değer değildir40,41. Bileşik 6'nın kullanımı, yakalayıcı olmayan cleavage ürünü için eşleştirilmiş bir karşılaştırma sağlar ve dahili yapısal karşılaştırmayı güçlendirir; ancak bu durum, aminooksi fonksiyonelliğinin SRC bağlanmasından sorumlu olduğunu veya hücrelerde SRC sinyalizasyonunun değiştiğini kanıtlamaz. Böyle bir iddiayı desteklemek için toplam SRC, p-SRC/SRC, aşağı akış sinyalizasyon belirteçlerinin doğrudan değerlendirilmesi ve ortogonal hedef etkileşimi ölçümleri gerekecektir.
MM-PBSA benzer şekilde, deneysel bir afinite ölçümü yerine örneklenen trajektoriler için nispeten enerjik bir tahmin sağlar. MMP9–Compound 5 ve SRC–Compound 5 için elde edilen tahminlerin SRC–Compound 6'ya göre daha elverişli olması, karşılaştırmalı trajektori gözlemleriyle tutarlıdır; ancak hesaplamalar örneklenen konformasyonlara ve metodolojik yaklaşımlara karşı hassastır ve mevcut analiz bir entropi düzeltmesi içermemiştir. Bu nedenle, docking, MD ve MM-PBSA arasındaki uyum yalnızca dahili hesaplama tutarlılığını artırır; MMP9 veya SRC'nin fonksiyonel modülasyonunu kanıtlamaz.
Abazik bölge tutma ile öngörülen protein etkileşimleri arasındaki ilişki henüz çözülememiştir. Bir olasılık, glutatyonla salınan aminooksi iskeletinin, belirlenmiş DNA lezyon tutma aktivitesini korurken aynı zamanda seçili proteinlerle bağımsız ve paralel etkileşimlere girmesidir. Diğer bir olasılık ise, öngörülen bazı protein etkileşimlerinin biyolojik olarak ilgili konsantrasyonlarda gerçekleşmemesi veya fenotipe katkıda bulunmamasıdır. Mevcut veriler bu olasılıkları birbirinden ayırt edememektedir. Mekanistik bir köprünün kanıtlanması, bileşik uygulamasının ardından DNA hasar yanıtlarının ve protein yolak değişikliklerinin eş zamanlı ölçümünü ve ardından bir aday hedefi değiştirmenin antikanser fenotipini değiştirdiğini gösteren perturbasyon deneylerini gerektirecektir.
Gelecekteki deneysel doğrulamalar, bu kimyasal serisinin önceki deneysel karakterizasyonunda kullanılan aynı hücresel model olan H1299 hücrelerinde gerçekleştirilmelidir. Kademeli bir strateji, öncelikle fenotipik ve DNA hasarı bağlamını belirlemek için konsantrasyon-yanıt canlılık, apoptoz, hücre döngüsü, migrasyon/invazyon ve γH2AX analizlerini kullanarak Bileşik 5'i, taşıyıcı (vehicle) ve eşleşen tuzaklayıcı olmayan Bileşik 6 ile karşılaştırmalıdır42. Ardından MMP9, jelatin zimografisi ve protein ekspresyon analizi ile incelenmeli; SRC sinyal iletimi ise toplam SRC ve Tyr416-fosforile SRC üzerinden değerlendirilmeli ve temel sinyal okuması olarak p-SRC/SRC oranı kullanılmalıdır. Doğrudan bileşik-protein etkileşimi, yüzey plazmon rezonansı gibi ortogonal bir hedef etkileşim yöntemi kullanılarak bağımsız olarak değerlendirilmelidir43. Bir etkileşim adayı, yalnızca doğrudan bağlanma kanıtları ilgili hücresel fonksiyonel okuma ile uyumlu olduğunda deneysel olarak desteklenmiş kabul edilmelidir. MMP9 veya SRC'nin genetik veya farmakolojik perturbasyonu, adaylardan herhangi birinin H1299 fenotipine nedensel olarak katkıda bulunup bulunmadığının daha ileri bir testi olacaktır. Bu kademeli çerçeve, önceden belirlenmiş olan abazik bölge tuzaklama aktivitesi ile bilgisayarla önceliklendirilen MMP9/SRC etkileşim hipotezleri arasındaki ayrımı korurken, sonraki deneysel testler için doğrudan bir yol tanımlar.
Açıklamalar
Yazarlar, bu çalışma ile ilgili herhangi bir rakip finansal çıkarlarının veya diğer çıkar çatışmalarının olmadığını beyan ederler. Fon sağlayan kuruluşların çalışmanın tasarımında; verilerin toplanması, analizi veya yorumlanmasında; makalenin yazımında veya sonuçların yayınlanması kararında herhangi bir rolü olmamıştır.
Teşekkürler
Bu çalışma, Liaoning Eyaleti Eğitim Bakanlığı Gençlik Projesi (JYTQN2023441), Liaoning Eyaleti Bilim ve Teknoloji Bakanlığı Ortak Fonu Doktora Araştırma Başlangıç Projesi (2023-BSBA-151) ve Jinzhou Tıp Üniversitesi Genç Bilimsel ve Teknolojik Yetenek Destek Projesi (JYQT202305) tarafından desteklenmiştir. Taslak revizyonu sırasında dil düzenleme, organizasyon ve revizyon desteği için ChatGPT (OpenAI) kullanılmıştır. Yazarlar bilimsel içeriği, veri yorumlamasını ve nihai ifadeyi inceleyip doğrulamış olup taslağın tüm sorumluluğunu üstlenmektedirler.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| ACPYPE | ACPYPE geliştiricileri / Bio2Byte | Versiyon 2023.11.14 | Küçük molekül ligand topoloji dosyalarının oluşturulması ve GROMACS uyumlu formata dönüştürülmesi. |
| AmberTools (Antechamber) | AMBER Geliştirme Ekibi | AmberTools 23.3 | AM1-BCC kısmi yük ataması ve GAFF2 ligand parametrelerinin oluşturulması. |
| AutoDock Vina | Forli Laboratuvarı, Scripps Research | Sürüm 1.2.5 | Moleküler kenetleme ve sıralanmış protein-ligand pozlarının oluşturulması. |
| AutoDockTools (MGLTools) | Hesaplamalı Yapısal Biyoloji Merkezi, Scripps Research | Sürüm 1.5.7 | Reseptör ve ligand hazırlığı, Gasteiger yük ataması, döndürülebilir bağ tanımlaması ve PDBQT dönüşümü. |
| BIOVIA Discovery Studio Visualizer | Dassault Systèmesèmes BIOVIA | Versiyon 2025 | Kenetlenme pozu görselleştirme ve protein-ligand etkileşimi incelemesi. |
| CHARMM36 kuvvet alanı | MacKerell Laboratuvarı / CHARMM kuvvet alanı geliştiricileri | CHARMM36 | Moleküler dinamik hesaplamaları için protein parametrizasyonu; çalışma boyunca tutarlı bir şekilde CHARMM36 kullanılmıştır (CHARMM36m değil). |
| Chem3D Ultra (ChemOffice Professional) | Revvity Signals Yazılımı | Versiyon 22.2 | MMFF94 kuvvet alanı kullanılarak ligand enerji minimizasyonu. |
| Bileşikler 1–6 | Li ve ark., ACS Chemical Biology (2022) çalışmasında açıklandığı üzere önceden sentezlenmiştir | Kullanılamaz | Hesaplamalı iş akışında kullanılan glutatyon-duyarlı ana ön ilaçlar, salınan ürünler ve eşleşmiş tuzaklama yapmayan kontrol çifti. |
| cytoHubba | cytoHubba geliştiricileri / Cytoscape Uygulama Mağazası | Sürüm 0.1 | Hub-hedef önceliklendirmesi için derece, aracılık merkeziliği ve yakınlık merkeziliği analizi. |
| Cytoscape | Cytoscape Konsorsiyumu | Sürüm 3.10.0 | Bileşik-hedef ve PPI ağı görselleştirmesi ve topoloji analizi. |
| DAVID Biyoenformatik Kaynakları | İnsan Retrovirolojisi ve İmmünoinformatik Laboratuvarı, Frederick Ulusal Kanser Araştırmaları Laboratuvarı | Web kaynağı | Gen Ontolojisi ve KEGG zenginleştirme analizi; nominal p &keşifsel dahil etme kriteri olarak < 0,10 kullanılmıştır; düzeltilmiş değerler raporlanmış ancak tutulan kümeyi tanımlamak için kullanılmamıştır. |
| GAFF2 | AMBER Geliştirme Ekibi | GAFF2 | Ligand kuvvet alanı parametrelemesi. |
| GeneCards İnsan Gen Veritabanı | GeneCards Suite / LifeMap Sciences, Inc. / Weizmann Bilim Enstitüsü | Web kaynağı | 'akciğer kanseri H1299' sorgusu kullanılarak hastalıkla ilişkili hedeflerin geri çağrılması. |
| gmx_MMPBSA | gmx_MMPBSA Geliştirme Ekibi | Sürüm 1.6.3 | GROMACS moleküler dinamik yörüngelerinden MM-PBSA bağlanma serbest enerjisi hesaplamaları; 100.0'dan 500 kare örneklendi–150,0 ns uç nokta hariç olmak üzere, 100 ps'lik aralıklarla 149,9 ns; entropi düzeltmesi uygulanmamıştır. |
| GROMACS | GROMACS Geliştirme Ekibi | Versiyon 2024.4 | Moleküler dinamik yörünge üretimi ve yörünge analizi. |
| Microbioinfo çevrimiçi görselleştirme platformu | Shanghai Newcore Biotechnology Co., Ltd. / Microbioinfo | Web kaynağı | Zenginleştirme çubuk grafikleri ve kabarcık grafiklerinin oluşturulması. |
| Open Babel | Open Babel Geliştirme Ekibi | Sürüm 3.1.1 | SwissTargetPrediction girdisi için yapı dosyalarının kanonik SMILES formatına dönüştürülmesi. |
| PubChem | Ulusal Biyoteknoloji Bilgi Merkezi, ABD Ulusal Tıp Kütüphanesi, NIH | Web kaynağı | Üç boyutlu ligand yapılarının geri çağrılması. |
| PyMOL Moleküler Grafikleri Sistemi | Schrödinger, LLC | Sürüm 2.5.4 | Protein hazırlama, yapısal görselleştirme ve kenetlenme pozunun incelenmesi. |
| RCSB Protein Veri Bankası | Yapısal Biyoenformatik Araştırma Kolaboratuvarı (RCSB) | PDB ID'leri: 3O96; 5UWD; 2AZ5; 1GKC; 2H8H | Sırasıyla AKT1, EGFR, TNF, MMP9 ve SRC için protein yapısal verilerinin geri çağrılması. |
| Lütfen çevirmek istediğiniz metni ("STRING" yazan kısım yerine) buraya ekleyin. Metni ilettiğinizde, belirttiğiniz tüm bilimsel ve akademik standartlara uygun olarak profesyonelce Türkçeye çevireceğim. | STRING Konsorsiyumu | Sürüm 11.5 | Protein-protein etkileşim ağı kurulumu; Homo sapiens; minimum gerekli etkileşim skoru 0,400; orijinal topoloji metrikleri 21 düğümlü, 116 kenarlı yönsüz PPI ağına karşılık gelmektedir. |
| SwissTargetPrediction | Moleküler Modelleme Grubu, Lozan Üniversitesi / SIB İsviçre Biyoenformatik Enstitüsü | Web kaynağı | Bileşik 1 için ters hedef tahmini–3; yalnızca Homo sapiens ile sınırlı türler. |
| TIP3P su modeli | GROMACS'ta uygulanmıştır | TIP3P | Protein-ligand komplekslerinin solvatasyonu için kullanılan üç-merkezli açık-solvent su modeli. |
| Venny | BioinfoGP, Centro Nacional de Biotecnologíía (CNB-CSIC) | Versiyon 2.1 | Bileşik tarafından öngörülen ve hastalıkla ilişkili hedef listelerinin kesişimi. |
Kaynaklar
- Sung H, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71:209-49.
- Herbst RS, Morgensztern D, Boshoff C. The biology and management of non-small cell lung cancer. Nature. 2018;553:446-54.
- Kim J, et al. Updates on the treatment of epidermal growth factor receptor-mutant non-small cell lung cancer. Cancer. 2025;131:e35778.
- Lin Y, Wang X, Jin H. EGFR-TKI resistance in NSCLC patients: mechanisms and strategies. Am J Cancer Res. 2014;4:411-35.
- Dasari S, et al. Pharmacological effects of cisplatin combination with natural products in cancer chemotherapy. Int J Mol Sci. 2022;23:1532.
- Ellie S, et al. Chemotherapy drugs cyclophosphamide, cisplatin and doxorubicin induce germ cell loss in an in vitro model of the prepubertal testis. Sci Rep. 2018;8:1773.
- De Bont R, van Larebeke N. Endogenous DNA damage in humans: a review of quantitative data. Mutagenesis. 2004;19:169-85.
- Ciccia A, Elledge SJ. The DNA damage response: making it safe to play with knives. Mol Cell. 2010;40:179-204.
- David SS, Williams SD. Chemistry of glycosylases and endonucleases involved in base-excision repair. Chem Rev. 1998;98:1221-62.
- Robson CN, Hickson ID. Isolation of cDNA clones encoding a human apurinic/apyrimidinic endonuclease that corrects DNA repair and mutagenesis defects in E. coli xth (exonuclease III) mutants. Nucleic Acids Res. 1991;19:5519-23.
- Sczepanski JT, et al. Rapid DNA-protein cross-linking and strand scission by an abasic site in a nucleosome core particle. Proc Natl Acad Sci U S A. 2010;107:22475-80.
- Krokan HE, Bjørås M. Base excision repair. Cold Spring Harb Perspect Biol. 2013;5:a012583.
- Li X, et al. Selective antitumor activity and photocytotoxicity of glutathione-activated abasic site trapping agents. ACS Chem Biol. 2022;17:797-803.
- Hopkins AL. Network pharmacology: the next paradigm in drug discovery. Nat Chem Biol. 2008;4:682-90.
- Meng XY, et al. Molecular docking: a powerful approach for structure-based drug discovery. Curr Comput Aided Drug Des. 2011;7:146-57.
- Hollingsworth SA, Dror RO. Molecular dynamics simulation for all. Neuron. 2018;99:1129-43.
- Genheden S, Ryde U. The MM/PBSA and MM/GBSA methods to estimate ligand-binding affinities. Expert Opin Drug Discov. 2015;10:449-61.
- O'Boyle NM, et al. Open Babel: an open chemical toolbox. J Cheminform. 2011;3:33.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47:W357-64.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13:2498-504.
- Stelzer G, et al. The GeneCards Suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 2016;54:1.30.1-1.30.33.
- Oliveros JC. Venny: an interactive tool for comparing lists with Venn's diagrams [Internet]. BioinfoGP, CNB-CSIC; 2007-2015.
- Szklarczyk D, et al. The STRING database in 2021: customizable protein-protein networks and functional characterization of user-uploaded gene/measurement sets. Nucleic Acids Res. 2021;49:D605-12.
- Chin CH, et al. cytoHubba: identifying hub objects and subnetworks from complex interactome. BMC Syst Biol. 2014;8:S11.
- Sherman BT, et al. DAVID: a web server for functional enrichment analysis and functional annotation of gene lists (2021 update). Nucleic Acids Res. 2022;50:W216-21.
- Kim S, et al. PubChem 2023 update. Nucleic Acids Res. 2023;51:D1373-80.
- Eberhardt J, et al. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61:3891-8.
- Gerek ZN, Ozkan SB. A flexible docking scheme to explore the binding selectivity of PDZ domains. Protein Sci. 2010;19:914-28.
- Abraham MJ, et al. GROMACS: high-performance molecular simulations through multi-level parallelism from laptops to supercomputers. SoftwareX. 2015;1-2:19-25.
- Best RB, et al. Optimization of the additive CHARMM all-atom protein force field targeting improved sampling of backbone and side-chain dihedral angles. J Chem Theory Comput. 2012;8:3257-73.
- Vassetti D, Pagliai M, Procacci P. Assessment of GAFF2 and OPLS-AA general force fields in combination with the water models TIP3P, SPCE, and OPC3 for the solvation free energy of druglike organic molecules. J Chem Theory Comput. 2019;15:1983-95.
- Jakalian A, Jack DB, Bayly CI. Fast, efficient generation of high-quality atomic charges. AM1-BCC model: II. Parameterization and validation. J Comput Chem. 2002;23:1623-41.
- Sousa da Silva AW, Vranken WF. ACPYPE—AnteChamber PYthon Parser interfacE. BMC Res Notes. 2012;5:367.
- Case DA, et al. AmberTools. J Chem Inf Model. 2023;63:6183-91.
- Valdés-Tresanco MS, et al. gmx_MMPBSA: a new tool to perform end-state free-energy calculations with GROMACS. J Chem Theory Comput. 2021;17:6281-91.
- Islam MT, Jang NH, Lee HJ. Natural products as regulators against matrix metalloproteinases for the treatment of cancer. Biomedicines. 2024;12:794.
- Mondal S, et al. Matrix metalloproteinase-9 (MMP-9) and its inhibitors in cancer: a minireview. Eur J Med Chem. 2020;194:112260.
- Rashid ZA, Bardaweel SK. Novel matrix metalloproteinase-9 (MMP-9) inhibitors in cancer treatment. Int J Mol Sci. 2023;24:12133.
- Kessenbrock K, Plaks V, Werb Z. Matrix metalloproteinases: regulators of the tumor microenvironment. Cell. 2010;141:52-67.
- Vandooren J, Van den Steen PE, Opdenakker G. Biochemistry and molecular biology of gelatinase B or matrix metalloproteinase-9 (MMP-9): the next decade. Crit Rev Biochem Mol Biol. 2013;48:222-72.
- Merchant N, et al. Matrix metalloproteinases: their functional role in lung cancer. Carcinogenesis. 2017;38:766-80.
- Chabanon RM, et al. Targeting the DNA damage response in immuno-oncology: developments and opportunities. Nat Rev Cancer. 2021;21:701-17.
- Das S, et al. Surface plasmon resonance as a fascinating approach in target-based drug discovery and development. TrAC Trends Anal Chem. 2024;171:117501.