Bu protokol, insan immün yetmezlik virüsü-1 (HIV-1) pozitif ve negatif kişilerden alınan hızlı otopsi sonrası beyin dokusundan yüksek saflıkta insan myeloid hücrelerinin/mikrogliaların izolasyonunu, saflaştırılmasını ve kültürlenmesini tanımlamaktadır. Bu yöntem; myeloid hücre/mikroglia biyolojisinin, beyindeki HIV rezervuarlarının, nöroinflamasyonun ve HIV tedavi stratejilerinin araştırılması için güçlü bir ex vivo platform sağlamaktadır.
Yöntem makalesi
İnsan İmmün Yetmezlik Virüsü-1 Kalıcılığının İncelenmesi İçin Beyin Mikroglialarının İzolasyonu
* These authors contributed equally
Bu makalede
Özet
Özet
HIV-1 (HIV) pozitif veya negatif kişilerden elde edilen hızlı otopsi sonrası beyin dokularından primer insan beyin miyeloid hücrelerini (BrMC'ler) izole etmek, kültürlemek ve incelemek için sağlam bir protokol oluşturmuş ve optimize etmiş bulunmaktayız; bu protokolde >BrMC'lerin %97,3'ü beyin mikroglialarıdır (MG). Bu nedenle, hücre popülasyonlarını daha iyi temsil etmek için izole edilen bu BrMC'lerden MG veya BrMC/MG olarak bahsediyoruz. Bu yöntem kapsamlı bir... ex vivo mikroglial biyolojisinin; beyindeki HIV rezervuarlarının korunmasındaki, nöroinflamasyonun aracılanmasındaki ve nöronal hasara katkı sağlamadaki rolleri ile HIV kür stratejilerinin değerlendirilmesini kapsayan incelemesi.
Hücresel canlılığı ve RNA/protein bütünlüğünü korumak amacıyla, hızlı araştırma otopsisi sonrası beyin dokuları ölümden sonraki 6 saat içinde toplandı. Frontal, parietal ve oksipital korteksler, hipokampus ve bazal gangliyonlar dahil olmak üzere birden fazla bölge, enzimatik sindirim ve kontrollü mekanik dissosiyasyon kullanılarak işlendi; ardından miyelin kalıntılarının etkili bir şekilde uzaklaştırılması ve eritrosit lizisi ile canlı tek hücreli süspansiyonlar oluşturmak için yoğunluk gradyan santrifüjasyonu uygulandı. BrMC'ler/MG, saflığı ve özgünlüğü sağlamak için CD3⁺ T hücresi yoksunlaştırmasını ve ardından CD11b⁺ manyetik boncuk zenginleştirmesini içeren iki aşamalı bir izolasyon yaklaşımı kullanılarak saflaştırıldı.
Saflaştırılmış myeloid hücreler, uzun süreli ex vivo kültür sırasında canlılığı ve fonksiyonel bütünlüğü korumak için M-CSF ile desteklenen tanımlanmış koşullar altında kültüre edilmiştir. Bu optimize edilmiş platform, BrMC'ler/MG'deki beyin yerleşik HIV rezervlerinin ve ilgili mekanizmaların aşağı yönlü moleküler, immünolojik ve virolojik analizleri için güvenilir ve ölçeklenebilir bir platform sağlar.
Giriş
Beyin miyeloid hücreleri (BrMC'ler)/mikroglia, merkezi sinir sistemindeki (MSS) temel doğuştan gelen bağışıklık hücreleridir1,2,3. Sağlıklı koşullarda, beyni sürekli olarak izlerler ve sinaptik budama, kalıntıların temizlenmesi ve nöronların desteklenmesi gibi görevlere yardımcı olurlar4,5,6. Hastalık durumunda, mikroglia immünolojik olarak aktive olur ve bu durum, çeşitli MSS bozukluklarında nörodejenerasyonda temel bir rol oynayan nöroinflamasyona yol açar7,8,9. HIV-1 (HIV) enfeksiyonu sırasında, BrMC'ler/mikroglia, MSS T hücreleri ve muhtemelen astrositlerle birlikte beyindeki ana HIV rezervuarlarıdır; astrositlerin MSS'deki HIV rezervuarlarında muhtemelen daha küçük bir rolü vardır. Mikroglia, etkili antiretroviral tedaviye (ART) rağmen, latent olarak enfekte olmuş, entegre proviral HIV DNA'sını taşır ancak düşük düzeyde HIV RNA ekspresyonunu sürdürür10,11,12. BrMC'lerde/mikroglia'da süregelen HIV enfeksiyonu kronik inflamasyona yol açar ve modern ART altında bile, HIV ile yaşayan kişilerin (PWH) %50'sine kadarında bilişsel, davranışsal ve motor semptomlarla kanıtlandığı üzere, HIV ile ilişkili nörobilişsel bozukluk (HAND) ile ilişkilidir13,14,15,16. Bu nedenle, kalıcı olarak HIV enfeksiyonlu mikroglianın işlevini anlamak; HIV enfeksiyonu ve latansının moleküler mekanizmasını, mikroglianın astrositler ve diğer MSS hücreleri ile olan etkileşimini, nöronal hasarı ve nöroHIV'e karşı tedavi hedefleri bulmak için kritik olan HAND hastalık sürecini öğrenmenin anahtarlarından biridir11,12,17.
Ancak, insan postmortem beyin dokusu kullanılarak mikroglia hücrelerinin incelenmesinde teknik zorluklar bulunmaktadır. Özellikle beyaz maddedeki yüksek miyelin içeriği, hücreleri hapsedebilir ve filtreleri tıkayabilir; bu durum, immünmanyetik seleksiyondan önce miyelin uzaklaştırılmadığı sürece hücre geri kazanımını düşürür18,19. PWH ölümünden sonra, TMEM119 ve P2RY12 gibi hücre yüzey belirteçleri parçalanabilir, bu da mikrogliaların doğru bir şekilde tanımlanmasını zorlaştırır20,21. Ayrıca, HIV ile enfekte beyinlerdeki miyeloid hücreler, mikroglia ile bazı ortak belirteçleri paylaşan periferik monositler ve doku yerleşik makrofajlar içerir; bu nedenle, saf BrMC popülasyonunu, özellikle de mikrogliaları zenginleştirmek için ek adımlar gereklidir22,23.
İnsan mikroglialarının izole edilmesine yönelik mevcut yaklaşımlar, HIV ile enfekte olmuş post-mortem dokularda iyi sonuç vermemektedir. Floresanla aktive edilen hücre ayıklama yöntemi kapsamlı sonuçlar sunar ancak pahalı ekipman gerektirir, daha fazla zaman alır ve değerli insan beyin dokularının küçük miktarlarından düşük hücre verimi sağlar24,25. İmmünopanning spesifiktir ancak aynı anda birçok beyin bölgesinden gelen örnekleri işleyemez ve gecelik sevkiyat sonrası hızlı doku işlemi gerektiren post-mortem dokular için uygun olmayan uzun bir inkübasyon süresi gerektirir26,27. Ayrıca, bu yöntemlerin hiçbiri, HIV ile enfekte olmuş MSS hücrelerinin tam bir immün profilini çıkarmak için gereken T lenfositlerinin ve myeloid hücrelerin aynı örnekten geri kazanılmasına olanak tanımaz17,28.
Bu protokol, HIV ile enfekte postmortem insan beyin dokularından mikroglia ve diğer MSS bağışıklık hücrelerinin izolasyonu ve zenginleştirilmesi için tekrarlanabilir, güvenilir ve verimli bir yaklaşım sunmaktadır. Kontrollü mekanik disosyasyon, hafif enzimatik sindirimle (örneğin, TrypLE Express ve DNase I) birleştirildiğinde, yüzey antijenlerini büyük ölçüde koruyabilir ve hücre agregasyonunu minimize edebilir29,30. Miyelin, Percoll yoğunluk gradyanı santrifügasyonu ile uzaklaştırılır ve ardından CD3⁺ T hücrelerinin ve CD11b⁺ myeloid hücrelerin immunomanyetik ayrıştırması gerçekleştirilir31,32. Önemli bir nokta olarak, hafif enzimatik koşulların kullanımı, CD11b ve CD68 dahil olmak üzere temel myeloid markerların yanı sıra TMEM119 ve P2RY12 gibi mikrogliaya özgü biyobelirteçleri koruyarak, MSS hücrelerinin doğru bir şekilde karakterize edilmesini ve aşağı akış sinyal yolu analizlerini mümkün kılar33. İki aşamalı seçim yaklaşımı, aynı zamanda virolojik ve immünolojik çalışmalar için uygun, yüksek saflıkta bir CD3⁺ T hücresi fraksiyonu oluşturur; bu durum, T hücrelerinin viral MSS rezervuarındaki rolü ve T hücrelerinin beyne infiltrasyonu sonrası gelişen HIV ile ilişkili nörolojik hasar göz önüne alındığında NeuroHIV için özellikle önemlidir34,35.
Genel olarak, CD3⁺ T hücrelerinin başlangıçta tüketilmesi ve ardından CD3-negatif fraksiyondan CD11b⁺ miyeloid hücrelerin zenginleştirilmesini içeren bu iki aşamalı ardışık yaklaşım, bu kıymetli, sınırlı ve değerli doku örneklerinin kullanımını maksimize ederken hem hücre saflığını hem de MSS hücre verimini artırır. İzole edilen hücreler; bulk ve tek hücreli RNA dizileme, akış sitometrisi, fonksiyonel analizler ve MSS yerleşik bağışıklık hücreleri içindeki replikasyon yeteneğine sahip viral rezervuarları belirlemek için HIV DNA/RNA kantifikasyonu ve viral outgrowth analizlerini içeren virolojik analizler gibi geniş bir yelpazedeki alt uygulamalar için uygundur17,36,37.
Birçok PWH ART baskılaması altında olduğu veya yaşamlarının sonunda yalnızca kısa süreli ART kesintisi yaşadığı için, bu protokol BSL-2+ koşulları altında postmortem beyin dokusu işleme kapasitesine sahip laboratuvarlarla uyumludur. Ayrıca, izolasyon sonrası BrMC'lerin/mikrogliaların spesifikliğini doğrulamak için yalnızca standart immunomanyetik ayırma ve akış sitometrisi platformları gerektirir. Küçük modifikasyonlarla, Alzheimer hastalığı, multipl skleroz, uzun süreli COVID19 ve travmatik beyin hasarı gibi MSS hastalıklarının çalışılmasına da uyarlanabilir38,39,40. Bu protokol aynı zamanda SIVmac251 veya SIVmac239 enfekte insan dışı primatlardan (NHP'ler)12,41 ve HIV enfeksiyonu veya latansının humanize fare modellerinden beyin hücreleri izole etmek için optimize edilerek beyindeki HIV enfeksiyonunun fizyolojik olarak ilgili bir modelini sağlamaktadır. İnsan beyinlerinin aksine, bu hayvan modellerine daha kolay erişilebilir ve HIV enfeksiyonunun, HIV latansının ve ilişkili nöroHIV'in mekanistik ve translasyonel çalışmaları için değerli bir tamamlayıcı kaynak sunarlar.
Protokol
NOT: Tüm insan/NHP dokularını BSL-2 koşulları altında işleyin. Percoll işlemi, ACK tamponu ve DMSO için önlük, eldiven, maske ve yüz siperliği dahil olmak üzere uygun kişisel koruyucu ekipman kullanın. Kimyasal ve biyolojik atıkları kurumsal yönergelere göre bertaraf edin. Bisturi, pipet ve Petri kapları gibi doku disosyasyonu sırasında kullanılan tüm tek kullanımlık ekipmanları, biyotehlike torbalarına atmadan önce %10'luk çamaşır suyu ile durulayın. Pens ve makas gibi yeniden kullanılabilir ekipmanları, yıkama ve otoklavlama işleminden önce %10'luk SDS ile durulayın.
1. Beyin dokusu toplama
- İnsan örnekleri
NOT: Bu çalışmada kullanılan insan dokuları, California Üniversitesi, San Diego (UCSD) Kurumsal Gözden Geçirme Kurulu (IRB) tarafından onaylanmış protokoller kapsamında elde edilmiştir (IRB No. 160563)12. İnsan donörler, antiretroviral tedavi (ART) alan HIV ile yaşayan bireylerdir. Yaş, cinsiyet, ölüm sonrası aralık (PMI) ve ART durumu dahil olmak üzere temel donör özellikleri burada kısaca özetlenmiş olup, bu donör özellikleri önceki yayında ayrıntılı olarak açıklanmıştır12.- Hücre canlılığını ve RNA bütünlüğünü korumak için dokuları ölümden sonra ≤6 h içinde toplayın ve 24 h içinde işleme laboratuvarına gönderin.
- NHP örnekleri
NOT: Rhesus makakları (Macaca mulatta), Emory Ulusal Primat Araştırma Merkezi'nde (ENPRC, PROTO201700286) veya California Ulusal Primat Araştırma Merkezi'nde (CNPRC, UCD IACUC #22832) barındırılmıştır. Hayvan bakımı ve deneysel prosedürler, ilgili Kurumsal Hayvan Bakım ve Kullanım Komitelerinin (IACUCs) düzenlemelerine uygun olarak yürütülmüş olup kurumsal ve federal kılavuzlara uyulmuştur. Tüm hayvan bakım tesisleri, ABD Tarım Bakanlığı ve Uluslararası Laboratuvar Hayvan Bakımı Değerlendirme ve Akreditasyon Birliği (AAALAC) tarafından akredite edilmiştir.- Dokuları nekropsi sonrası hemen toplayın12.
- Doku toplama
NOT: Tüm işlemleri buz üzerine yerleştirilmiş ön soğutmalı tartım kaplarında gerçekleştirin.- Doku mevcudiyetine bağlı olarak, beyin bölgesi başına (örneğin; frontal, paryetal, oksipital korteks, hipokampus, bazal ganglia) 2–20 g toplayın.
- Dokuları ART ile desteklenmiş buz gibi soğuk DMEM/F12 içine yerleştirin: 100 nM Nevirapine, 200 nM Raltegravir, 25 nM Darunavir. Dokuları 4 °C'de muhafaza edin.
- Taşıma koşulları
- Örnekleri buz üzerinde, 4 °C'de sızdırmaz tüplerde saklayın.
- Tüplerin sertifikalı personel tarafından UN3373 Kategori B düzenlemeleri kapsamında taşınmasını sağlayın12. İşleme laboratuvarına buz üzerinde gecelik sevkiyatla gönderin.
2. Doku hazırlama
- Dokuyu 50 mL'lik tüplere aktarın. Üst faz berraklaşana kadar, tüpleri 20–40 mL soğuk DNase (10 U/mL) içeren HBSS ile nazikçe tersyüz ederek dokuyu 10–15 kez yıkayın.
NOT: Bu işlem kanı, döküntüleri ve kontaminantları uzaklaştırır; bu nedenle yıkama sırasında doku parçalarının serbestçe hareket edebilmesi için hacmin yeterli olduğundan emin olun. - Menenksleri ve büyük damarları steril pensler kullanarak çıkarıp atın.
- Dokuyu yeni bir Petri kabına aktarın ve beyin bölgesine göre doku ağırlığını (kap hariç) kaydedin.
- Dokuyu, ~10 mL HBSS + DNase I (10 U/mL) içerisinde steril bir pens yardımıyla ~1–2 mm'lik fragmanlar halinde parçalayın.
NOT: Parçalama işlemi bir bistüri kullanılarak Petri kabında da yapılabilir.
3. Enzimatik sindirim
- 10 mL 1x rekombinant hücre ayırma enzimi ve DNaz I (final 10 U/mL) karıştırılarak sindirim karışımı hazırlayın.
- Rotary shakeri şu sıcaklığa kadar ön ısıtmaya tabi tutun: 37 °C ve rekombinant hücre ayırma enzimini, DNase I (final 10 U/mL) ile birlikte bir 37 °C inkübatör
- 3.1 adımındaki sindirim karışımının içindeki dokuyu flasklara (hacimler için T150) aktarın > 50 mL; eğer daha küçük balon jojeler kullanılıyorsa <50 mL) ve döner çalkalayıcılarda şu koşullarda inkübe edin: 37 °C, 150 rpm, 30 dk.
- Sırasıyla 10 mL ve ardından 5 mL'lik pipetler kullanarak, sıvıyı pipetle yukarı-aşağı çekip bırakarak nazikçe trite edin.
NOT: Sert pipetlemeden kaçının. - Dokunun yerleşmesi için oda sıcaklığında 5 dakika inkübe edin.
- Hücre toplama
- Süpernatantı 50 mL'lik bir tüpe toplayın; bu, Koleksiyon #1Enzim aktivitesini durdurmak için toplanan süpernatanta %10 FBS ekleyin.
- Kalan dokuyu HBSS + DNase I (10U/mL) + %10 FBS (doku başına 10 mL/g) içerisinde yeniden süspande edin. Nazikçe triture edin ve 70–100 µm süzgeçler.
NOT: Eğer enzimatik sindirim yeterliyse, tüm doku süzgeçten geçecektir. - 500'de santrifüjleyin × g, oda sıcaklığında, 10 dk; bu Koleksiyon #2.
NOT: Geri kazanımı maksimize etmek için süspansiyonun çökmesini bekleyin ve yalnızca süpernatanı yeni bir tüpe aktarın.
- Son işlem
- Toplanan örnekleri (C1 ve C2) 500'de santrifüjleyin × g 10 dakika boyunca.
- Süpernatantları atın. C1 ve C2'den elde edilen hücre peletlerini tek bir tüpte toplayın.
4. Miyelin kalıntılarının uzaklaştırılması (Percoll gradyanı)
- 9 birim Percoll ile 1 birim 10x HBSS'yi karıştırarak izotonik Percoll (SIP) hazırlayın. Doku başına ~2,5 mL/g olacak şekilde yeterli miktarda hazırlayın.
- 3,5 mL SIP'yi 5,5 mL 1x HBSS ile karıştırarak %35'lik Percoll çalışma solüsyonu hazırlayın. Doku başına ~4,5 mL/g olacak şekilde yeterli miktarda hazırlayın.
- Densite ayrıştırma
- Adım 3.7.2'den elde edilen hücre peletini %35'lik Percoll içinde yeniden süspande edin. Orijinal doku ağırlığının (yani disosyasyon öncesi ölçülen doku ağırlığının) gramı başına yaklaşık 4,5 ml %35'lik Percoll kullanın.
- NOT: Hücreleri %35'lik Percoll ile 50 mL'lik bir tüpte yeniden süspande edin (tüp başına maksimum 30 mL). Dokular büyükse, hücreleri birden fazla 50 mL'lik tüpe bölün.
- Her tüpün üzerine dikkatlice 10 mL 1x HBSS ekleyerek bir katman oluşturun. Buz üzerinde veya 4 °C'de 5 dk inkübe edin.
- 800 × g, 45 dk, 4 °C'de santrifüjleyin (yavaşlama sırasında fren kullanmayın).
- Katman geri kazanımı
- Süpernatantı ve miyelin katmanını, alttaki ara fazı (interphase) bozmadan dikkatlice uzaklaştırın.
- Döküntü taşınmasını önlemek için peleti ve ara fazı (karışık beyin hücrelerini ve Percoll fraksiyonunu içeren miyelin katmanının altındaki kısım) yeni bir 50 mL'lik konik tüpe toplayın.
- Seyreltme ve yıkama
- Percoll'ü seyreltmek için 3:1 oranında HBSS ekleyin (örneğin, toplanan süspansiyonun her 10 mL'si için 30 mL HBSS) (~3x seyreltme).
- 1.000 × g, 10 dk, 4 °C'de santrifüjleyin (tam fren ve hızlanma kullanın).
- Süpernatantı tamamen uzaklaştırın.
- Eritrosit lizizi ve hücre sayımı
- Adım 4.5.3'teki hücre plakasına ACK tamponu uygulayın (5 mL, 10 dk, 37 °C).
- Trypan blue kullanarak canlı hücreleri sayın.
- NOT: Beklenen verim: Dokuların durumuna bağlı olarak ~0,1–1 × 10⁶ /g doku CNS hücresi.
- ACK liziz tamponunu inaktive etmek için 10 mL PBS ekleyin. 500 × g hızda 5 dk santrifüjleyin.
NOT: İsteğe bağlı duraklatma: Hücreler, sortlama öncesinde 0,5–1 × 10⁶ hücre/mL besiyeri (DMEM/F-12, sodyum Piruvat ile glutamin takviyesi (500 mL), %10 ısı-inaktive FBS, 1x HEPES tampon solüsyonu, 1x Antibiyotik-Antimikotik (100x stoktan 5,5 mL), 10 ng/mL MCSF (1.000x stok)) yoğunluğunda gece boyunca kültüre edilebilir.
Yukarıda açıklanan doku disosyasyonu, eritrosit lizizi, hücre sayımı ve isteğe bağlı gece boyu kültür adımlarının tamamlanmasının ardından, CD3+ ve CD11b+ hücre popülasyonları, ticari olarak mevcut hücre izolasyon kitleri kullanılarak üretici talimatlarına göre izole edilmiştir. Kitler, reaktifler ve tam izolasyon prosedürü ile ilgili detaylı bilgiler Malzemeler Tablosu'nda verilmiş olup, izolasyon iş akışının kısa bir özeti aşağıda sunulmuştur.
5. CD3⁺ T hücresi izolasyonu (pozitif seleksiyon)
NOT: Önce, CD3 için salım formatında bir immünomanyetik pozitif seçilim kiti (bkz. Materyaller Tablosu) kullanarak, hazırlanan tek hücreli süspansiyondan CD3+ hücrelerini izole edin. Bu bölümde elde edilen hem CD3+ hem de CD3- fraksiyonlarını saklayın. CD3- fraksiyonu Adım 6 için gereklidir.
- Serbest bırakma tamponunu hazırlayın.
- Kullanım gününde, 40x serbest bırakma tamponu konsantresini hücre ayırma tamponu ile seyrelterek 1x serbest bırakma tamponu hazırlayın ve 4–6 °C'de veya buz üzerinde saklayın.
NOT: İşlenecek her örnek için 2,5 mL 1x serbest bırakma tamponu hazırlayın.
- Kullanım gününde, 40x serbest bırakma tamponu konsantresini hücre ayırma tamponu ile seyrelterek 1x serbest bırakma tamponu hazırlayın ve 4–6 °C'de veya buz üzerinde saklayın.
- Hücre örneğini hazırlayın ve seçim kokteyli ile işaretleyin.
- 4.6.3 adımından elde edilen hücre peletini, 5 mL'lik yuvarlak tabanlı polistiren bir tüp içinde hücre ayırma tamponu ile 1 × 10⁸ hücre/mL konsantrasyonda yeniden süspanse edin.
- Örnek başına 100 µL olacak şekilde CD3 seçim kokteylini örneğe ekleyin. Örneği nazikçe karıştırın ve oda sıcaklığında 3 dk inkübe edin.
- Örneği manyetik partiküllerle işaretleyin.
- Manyetik partikülleri kullanmadan hemen önce 30 sn boyunca vorteksleyin. Örnek başına 100 µL olacak şekilde manyetik partikülleri örneğe ekleyin. Örneği nazikçe karıştırın ve oda sıcaklığında 3 dk inkübe edin.
- Hücre ayırma tamponu ile örneği toplam 2 mL hacme tamamlayın ve süspansiyonu pipetle iki veya üç kez nazikçe aşağı yukarı çekerek karıştırın.
- Manyetik ayırma ile CD3+ reaksiyonunu izole edin.
- Kapağı açık örnek tüpünü manyetik hücre ayırıcıya yerleştirin ve oda sıcaklığında 5 dk inkübe edin.
- NOT: Manyetik partiküllere bağlanan hücreler CD3+ fraksiyonunu oluşturur ve manyetik alan içindeki tüp duvarına yapışık kalır; serbest kalan süpernatant ise CD3- fraksiyonunu oluşturur.
- Tüpü manyetik ayırıcıdan çıkarmadan, süpernatantı CD3- fraksiyonu için ayrılmış temiz ve etiketli 15 mL'lik konik bir tüpe pipetleyin.
- Tüpü manyetik ayırıcıdan çıkarın ve tutulan hücreleri 2 mL hücre ayırma tamponu içinde nazikçe yeniden süspanse edin.
- Toplamda üç kez 5 dakikalık manyetik ayırma işlemi gerçekleştirmek için 5.4.1 ile 5.4.3 arasındaki adımları tekrarlayın ve tüm süpernatantları aynı CD3- fraksiyonu tüpünde toplayın.
- CD3+ fraksiyonunu manyetik partiküllerden serbest bırakın.
- Tutulan hücrelere 2,5 mL 1x serbest bırakma tamponu (adım 5.1.2'de hazırlanan) ekleyin ve süspansiyonu pipetle iki ila üç kez nazikçe aşağı yukarı çekerek karıştırın. Süspansiyonu oda sıcaklığında 3 dk inkübe edin.
- Kapağı açık tüpü manyetik hücre ayırıcıya yerleştirin ve oda sıcaklığında 5 dk inkübe edin.
- Tüpü manyetik ayırıcıdan çıkarmadan, süpernatantı CD3+ fraksiyonu için ayrılmış temiz ve etiketli 15 mL'lik konik bir tüpe pipetleyin.
NOT: Serbest bırakma tamponu, manyetik partikülleri işaretlenmiş hücrelerden ayırır: elde edilen süpernatant saflaştırılmış CD3+ fraksiyonudur, geri kalan manyetik partiküller ise manyetik alanda tüp duvarına bağlı kalır ve atılır.
- Hücre sayımı ve kriyoprezervasyon
- Hücreleri sayın ve geri kalan hücreleri bir kriyokarışimda (%90 FBS + %10 DMSO) isopropanol bazlı bir dondurma ortamında 24 sa boyunca kriyoprezerve ettikten sonra, CD3+ alikotlarını -80 °C'de şok dondurarak saklayın ve ardından örneği sıvı azota aktarın.
6. CD11b⁺ Miyeloid hücre izolasyonu (CD3⁻ fraksiyonundan)
NOT: Adım 5.4.4'ten saklanan CD3- fraksiyonu, anti-CD11b manyetik mikroboncuklar ve kolon formatında bir manyetik ayırıcı (bkz. Materyaller Tablosu) kullanılarak CD11b+ myeloid hücreleri izole etmek amacıyla ikinci bir immünomanyetik pozitif seçim adımından geçirilmiştir.
- Ayırma tamponunu hazırlayın ve hücre sayısını belirleyin.
- 20x konsantrasyonu izotonik durulama çözeltisi ile seyrelterek 1x BSA tabanlı ayırma tamponunu hazırlayın ve hazırlanan tamponu kullanıma kadar soğukta (4–8 °C) muhafaza edin.
- Bir hemositometre veya otomatik hücre sayıcı kullanarak CD3 fraksiyonundaki toplam hücre sayısını belirleyin.
- Hücreleri anti-CD11b manyetik mikroboncuklar ile işaretleyin.
- Hücre süspansiyonunu 300 × g hızda 10 dk santrifüjleyin ve süpernatantı tamamen aspire edin.
- Hücre peletini, toplam 1 × 10⁷ hücre başına 80 µL 1x BSA tabanlı ayırma tamponu içerisinde yeniden süspanse edin.
- Toplam 1 × 10⁷ hücre başına 20 µL anti-CD11b manyetik mikroboncuk ekleyin, iyice karıştırın ve 4–8 °C'de 15 dk inkübe edin.
- NOT: Buz üzerinde inkübe etmek, buzdolabına kıyasla daha uzun bir inkübasyon süresi gerektirebilir. Önerilen süreden daha uzun veya daha yüksek sıcaklıklarda inkübasyon yapmak, spesifik olmayan hücre işaretleme riskini artırabilir.
- İşaretlenmiş hücreleri, 1 × 10⁷ hücre başına 1 mL 1x ayırma tamponu ekleyerek yıkayın, 300 × g hızda 10 dk santrifüjleyin ve süpernatantı tamamen aspire edin.
- Toplam 1 × 10⁸ hücreye kadar olan hücreleri 500 µL ayırma tamponu içerisinde yeniden süspanse edin.
- Kolon tabanlı manyetik ayırmayı gerçekleştirin.
- Manyetik ayırma kolonunu manyetik ayırıcıya yerleştirin ve küçük hacimli kolon için 500 µL veya büyük hacimli kolon için 1 mL 1x ayırma tamponu ile durulayarak dengeleyin; durulama sıvısını atın.
NOT: Örnek az miktarda toplam hücre içeriyorsa küçük hacimli kolon kullanın. Dalak kaynaklı veya kombine immün preparatlar gibi yüksek toplam hücre sayısı içeren örnekler için büyük hacimli kolon kullanın. - Dengelenmiş kolonun altına temiz, 5 mL'lik yuvarlak tabanlı polistiren bir tüp yerleştirin ve 500 µL (küçük hacimli kolon) veya 1 mL (büyük hacimli kolon) işaretli hücre süspansiyonunu kolonun üst kısmına uygulayın.
- Örnek tamamen kolona girdikten sonra, küçük hacimli kolon için yıkama başına 500 µL veya büyük hacimli kolon için yıkama başına 1 mL 1x ayırma tamponu ekleyerek kolonu üç kez yıkayın. Her bir sonraki yıkama işlemini, yalnızca kolon rezervuarı boşaldığında gerçekleştirin.
NOT: Adım 6.3.2 ve 6.3.3'te toplanan kombine effluent, işaretlenmemiş CD11b- fraksiyonunu oluşturur. - Kolonu manyetik ayırıcıdan çıkarın ve CD11b+ fraksiyonu için belirlenmiş temiz, etiketli 5 mL'lik polistiren tüpün üzerine yerleştirin.
- Kolonun üst kısmına 1 mL (küçük hacimli kolon) veya 2 mL (büyük hacimli kolon) 1x ayırma tamponu pipetleyin ve kolonla birlikte verilen pistonu sertçe bastırarak işaretli hücreleri hemen toplama tüpüne boşaltın.
- Manyetik ayırma kolonunu manyetik ayırıcıya yerleştirin ve küçük hacimli kolon için 500 µL veya büyük hacimli kolon için 1 mL 1x ayırma tamponu ile durulayarak dengeleyin; durulama sıvısını atın.
- CD11b+ fraksiyonlarının kantifikasyonu ve alt süreç işlemleri
- Her iki fraksiyondaki (CD11b+ ve CD11b-) hücreleri sayın ve CD11b- alikotunu, geri kalan hücreleri bir kriyokarışım (90% FBS + 10% DMSO) içinde isopropanol tabanlı bir dondurma ortamında 24 saat boyunca kriyoprezerve ettikten sonra -80 °C'de şok dondurarak saklayın ve ardından örneği sıvı azota aktarın.
- CD11b+ hücreleri sonraki deneyler için kullanın.
Sonuçlar
Bu protokolde açıklanan optimize edilmiş iş akışı, post-mortem HIV enfekte insan beyin dokularından canlı, yüksek derecede zenginleştirilmiş T hücrelerinin ve BrMC'lerin/mikrogliaların tekrarlanabilir şekilde izole edilmesini sağlar. Protokolün başarılı bir şekilde yürütüldüğü, temel aşamalardaki hücre canlılığı değerlendirmesi, verim miktarının belirlenmesi ve immünofenotipik karakterizasyon gibi bir dizi kalite kontrol noktası aracılığıyla doğrulanır. Başarılı bir deneyden elde edilen temsili sonuçlar aşağıda açıklanmıştır.
Doku disosiasyonu ve hücre geri kazanımı
Şekil 1A'da belirtildiği üzere, mekanik disosiasyon ve yoğunluk gradyanı santrifügasyonunun ardından, iyi işlenmiş bir örnek, Percoll santrifügasyonundan sonra minimum kalıntı myelin debrisi içeren, görsel olarak berrak bir pelet vermelidir. PWH'den alınan hızlı otopsi beyin dokularının kullanıldığı temsili deneylerde, immünomanyetik seçim öncesindeki toplam hücre verimi genellikle beyin dokularının gramı başına 8,0 × 10⁴ ile 1,0 × 10⁶ hücre arasında değişmektedir; bu değer, dalak dokularından elde edilen verimlerden (~5 × 10⁷ hücre/g) (Tablo 1) önemli ölçüde daha düşüktür ve bu durum, bu dokular arasındaki doğal biyolojik farklılıkları yansıtmaktadır.
Düşük verim veya azalmış canlılık genellikle uzamış postmortem aralıklarla (>24 s), suboptimal doku saklama koşullarıyla veya homojenizasyon sırasındaki aşırı mekanik kuvvetle ilişkilidir. Bu gibi durumlarda, Percoll santrifügasyonunu takip eden miyelin tabakası daha kalın ve daha yaygın görünür ve MSS hücrelerini içeren ara faz daha az belirginleşir. Miyelin tabakasının eksik temizlenmesi (protokol adımı 4.4), trypan blue dışlama sayımı sırasında ölü hücrelerle karıştırılabilecek miyelin debris kontaminasyonuna yol açabilir. Bu kontaminasyon aynı zamanda sonraki antikor etiketlemesini bozarak manyetik ayırmanın verimliliğini tehlikeye atabilir. Miyelin taşınmasından şüpheleniliyorsa, immünomanyetik seçimden önce ek bir Percoll gradyan santrifügasyon adımı önerilir.
CD3+ T fraksiyonu
CD3⁺ T hücresi pozitif seçim adımı iki amaca hizmet eder: paralel MSS hücre analizleri için T hücresi fraksiyonunu zenginleştirmek ve izole edilen miyeloid hücrelerdeki potansiyel T hücresi kontaminasyonunu önlemek için miyeloid açısından zenginleştirilmiş fraksiyondaki infiltre T lenfositlerini azaltmak. Temsili deneylerde, CD3⁺ fraksiyonu toplam izole hücrelerin yaklaşık %2-8'ini (doku gramı başına yaklaşık 1 × 10⁴ hücre) oluşturmuştur (Tablo 1); bu durum, HIV enfeksiyonlu MSS dokularında sınırlı ve düşük düzeyde T hücresi infiltrasyonu olduğunu belirten önceki raporlarla tutarlıdır.
CD11b⁺ BrMC zenginleştirme, karakterizasyon ve ex vivo kültürü
CD3⁺ deplasyonunun ardından, CD3⁻ fraksiyonuna manyetik mikroboncuklar kullanılarak CD11b⁺ seçimi uygulanmıştır. Daha önce bildirildiği üzere(12), bu prosedür, ön seçim fraksiyonundaki %28,4'e kıyasla CD11b⁺ BrMC'leri %95,2'ye kadar zenginleştirmemizi sağlamıştır. T hücresi markörü CD3E için yapılan ve bir milyon BrMC içerisinde bir T hücresini tespit edebilen yüksek hassasiyetli RT-qPCR, izole edilen BrMC'ler/mikrogliada tespit edilebilir T hücresi olmadığını göstermiş(12), böylece yüksek saflığı teyit etmiş ve T hücresi kontaminasyonunu dışlamıştır.
Saflaştırılmış CD11b⁺ BrMC'ler, hücrelerin toparlanması ve tutunarak hücre büyümesini başlatmaları için 2 haftaya kadar mikroglia hücre ortamında kültüre edildi. Şekil 1B'de gösterildiği gibi, izole edilen insan BrMC'leri izolasyondan sonraki 5. gün kadar erken bir aşamada tek tabaka oluşturdu ve bipolar morfoloji sergiledi. Bu hücreler artık ex vivo ölçümler, karakterizasyon ve sonraki fonksiyonel analizler için hazırdır. NHP beyninden izole edilen CD11b⁺ fraksiyonunun akış sitometrisi tabanlı temsili saflık analizi Şekil 2A'da gösterilmektedir ve hücrelerin %97,3'ünün CD11b ve TMEM119'u birlikte eksprese ettiğini kanıtlamaktadır. Hem insan hem de diğer NHP BrMC preparatlarının saflığı daha önce tanımlanmıştır12. Bu analizlerde, CD11b⁺ fraksiyonu %28,4'ten %95,5'e zenginleştirilmiş olup, insan örneklerinden izole edilen popülasyonun %95,9'una kadar olan kısmı TMEM119⁺ hücrelerden oluşmuştur. Küçük bir oran diğer beyin yerleşik myeloid hücre popülasyonlarını temsil edebilecek olsa da, biz bu hücreleri mikroglia olarak adlandırıyoruz.
Spleen CD3 izolasyonu için benzer bir prosedür de uygulanabilir⁺ T hücreleri ve CD11b⁺ miyeloid hücreler (SMC'ler) (Tablo 1). Saflık değerlendirmesi, %~98,9 oranında CD3 olduğunu göstermiştir.+ hücreler ve %99,3 oranında CD11b+ hücreler (Şekil 2B,C)Bu canlı hücre popülasyonları (Şekil 2E,Fkültürde tutulabilir, böylece izole edilmiş MSS hücreleri ile eşleşmiş karşılaştırmalı analizler yapılmasına olanak sağlanır (Şekil 2D).
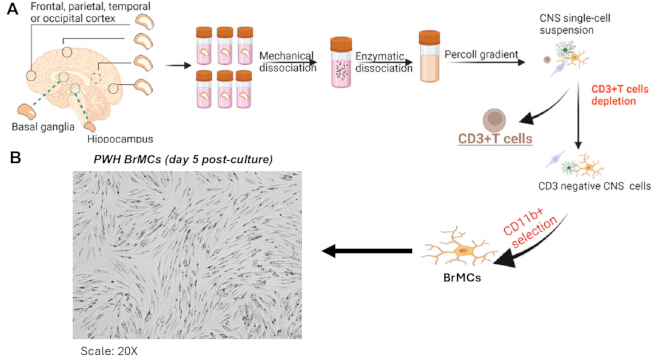
Şekil 1. BrMC'leri saflaştırmak için iki adımlı ardışık izolasyon prosedürü. (A) CD11b⁺ BrMC'leri saflaştırmak için kullanılan iki adımlı CNS hücre izolasyon prosedürünün şeması. (B) BrMC'lerin (100x büyütme) 5 günlük kültür sonrası morfolojisi, MG'nin kaba başarılı şekilde yapıştığını göstermektedir. Kısaltmalar: BrMCs = beyin miyeloid hücreleri; CNS = merkezi sinir sistemi; MG = mikroglia. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
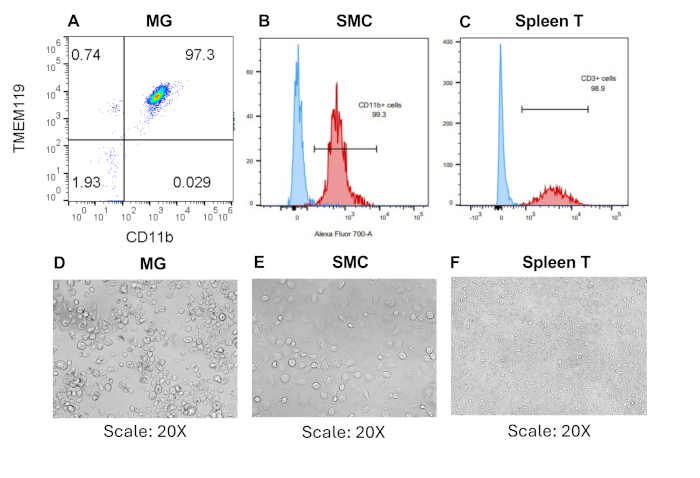
Şekil 2. Dalak T ve myeloid hücrelerinin başarılı izolasyonu. (A-C) Belirtilen antikorlar kullanılarak CD3⁺ ve CD11b⁺ fraksiyonlarının akış sitometri analizi. (D-F) Temsili görüntüler (alt kısım), beyin ve dalaktan izolasyonu takip eden kültürlemede 7 gün sonra mikroglia, CD3⁺ T hücreleri ve splenik myeloid hücreleri göstermektedir (Ölçek: 20x). Kısaltmalar: SMCs = dalak myeloid hücreleri; MG = mikroglia. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Bölge | Doku ağırlığı (g) | İzolasyon Öncesi Hazırlık | CD3+ T hücreleri | CD11b+ BrMC'ler/SMC | |||
| PWH | canlı hücreler | hücre/g doku | canlı hücreler | hücre/g doku | canlı hücreler | hücre/g doku | |
| FCP | 18.25 | 8,82E+06 | 4,83E+05 | 7,30E+05 | 1,33E+04 | 2,82E+06 | 1,55E+05 |
| PCT | 4.1 | 3,53E+05 | 8,61E+04 | 1,20E+05 | 2,93E+04 | ||
| TCX | 16 | 4,15E+06 | 2,59E+05 | 2,79E+06 | 1,74E+05 | ||
| OCC | 4.24 | 1,75E+06 | 4,13E+05 | 4,50E+05 | 1,06E+05 | ||
| CRB | 11.4 | 4,15E+06 | 3,64E+05 | 2,64E+06 | 2,32E+05 | ||
| H | 1 | 1,23E+06 | 1,23E+06 | 6,00E+04 | 6,00E+04 | ||
| SPL | 5.25 | 2,82E+08 | 5,37E+07 | 2,98E+07 | 5,68E+06 | 9,60E+06 | 1,83E+06 |
Tablo 1: MSS hücrelerinin iki aşamalı izolasyonu sonrası her bir hücre tipinin verimi.
Tartışma
Bu protokol ile tekrarlanabilir veriler toplamak için her adımı dikkatle takip etmek önemlidir. Herhangi bir kısmın atlanması veya aceleye getirilmesi hücre verimini, canlılığını ve saflığını düşürebilir. Analizden önceki en kritik faktör, dokuların ölümden sonra ne kadar hızlı işlendiğidir42. İnsan beyin dokusu mümkün olan en kısa sürede, ideal olarak 6–12 saat içinde işlenmelidir. Daha uzun süre beklemek, TMEM119 ve P2RY12 gibi mikroglia yüzey antijenlerinin yıkımına neden olur ve hücre canlılığını azaltır20. Bunu önlemek için, dokuların hızlıca transfer edilmesi ve derhal DNase I içeren HBSS içinde 4 °C'de saklanması kritik önem taşır.
Mekanik disosiyasyon dikkatle ayarlanmalıdır43. Aşırı homojenizasyon hücreleri parçalayarak DNA salınımına neden olur; bu da kümelenmeye yol açarak hem verimi hem de kolon verimliliğini düşürür44. Dokular yeterince homojenize edilmezse, canlı hücreler doku fragmanları içinde hapsolmuş halde kalacaktır. Disosiyasyon ortamına DNase I eklemek kümelenmeyi önlemeye yardımcı olur45. Aralarda durulama yapılarak üç ila dört öğütme döngüsü kullanmak genellikle iyi sonuç verir. Percoll yoğunluk gradyanı santrifügasyonu için, katmanların karışmasını ve hücrelerin ayrılmasının bozulmasını önlemek adına santrifüj ayarlarının tam olarak takip edilmesi ve frenin kullanılmaması önemlidir45. Percoll süspansiyonuna HBSS eklenirken, katmanların ayrı kalması için HBSS tüp duvarı boyunca yavaşça dökülmelidir. Eğer araştırmacılar bu konuda deneyimsizse, değerli doku kullanmadan önce renkli çözeltilerle pratik yapmaları önerilir. CD11b+ manyetik kolon ayrıştırması sırasında, hücreler ve tüm tamponlar 4–8 °C'de tutulmalıdır. Mikroboncuk inkübasyonu sırasında sıcaklığın bu değerin üzerine çıkması; nonspecific etiketlemeye, antikor capping'e ve boncuk alımına neden olabilir ve bunların tümü saflığı ve seçme verimliliğini önemli ölçüde azaltır33.
Bu protokol, farklı doku türlerine veya laboratuvar düzeneklerine uyarlanabilir. Kardiyak perfüzyonun yetersiz olduğu durumlar gibi dokunun çok fazla kırmızı kan hücresi içerdiği hallerde, bunları uzaklaştırmak ve ayrımı iyileştirmek için Percoll gradyan santrifügasyonu öncesinde bir ACK liziz adımı eklenebilir46. ACK inkübasyonu, lökosit canlılığını tehlikeye atabileceği için uzun süreler boyunca gerçekleştirilmemelidir47. Verimler düşük kalmaya devam ederse, süzgeç üzerinde kalan kalıntılar bir diseksiyon mikroskobu altında kontrol edilmelidir. Canlı doku miktarı fazlaysa, öğütme döngüsü sayısı artırılabilir veya doku parçaları süzgeç başına 0,5 g'dan daha küçük olacak şekilde kesilebilir. Percoll gradyanından geri kazanım yapılırken, ara fazı kaybetme riskine girmek yerine peletin üzerinde az miktarda Percoll bırakmak idealdir. MACS ayrımı sırasında kolon tıkanırsa, bu durum genellikle çok fazla hücre yüklendiğini veya süspansiyonda kalıntıların kaldığını gösterir.
Bu protokol HIV enfekte insan beyin dokuları için tasarlanmış olsa da, sonuçlar yorumlanırken dikkate alınması gereken bazı önemli kısıtlamalar vardır. Mekanik disosyasyon her zaman hücresel strese neden olur ve bu durum mikroglial gen ekspresyonunu geçici olarak değiştirebilir ve inflamatuar yolakları aktive edebilir33,48. Bir diğer kısıtlama, birincil seçim belirteci olarak CD11b kullanımıdır. CD11b, sadece mikroglialarda değil, birçok MSS miyeloid hücresinde bulunur ve ayrıca nöroinflamasyon nedeniyle HIV enfekte dokularda daha yaygın olan infiltre monositler ve makrofajlarda da mevcuttur49. Rezidan mikrogliaları infiltre hücrelerden ayırt etmek için TMEM119, P2RY12 ve SALL1 gibi mikrogliaya özgü belirteçler kullanılarak ileri analizler yapılması gerekir20,50. Üçüncü bir kısıtlama ise doku bulunabilirliği ve donör farklılıklarıdır. Postmortem insan beyin örnekleri ikame edilemez; bu durum, aynı donörden alınan teknik tekrarlar kullanılarak protokolün optimize edilmesini son derece zorlaştırır. Özellikle nörokognitif durumun, ART geçmişinin ve diğer sağlık sorunlarının geniş farklılıklar gösterdiği PWH grubunda, dokular arasında verim, canlılık ve mikroglia aktivasyonu açısından varyasyonlar vardır. Bu farklılıklar deneylerde dikkatle kaydedilmeli ve kontrol edilmelidir.
Diğer yöntemlerle karşılaştırıldığında; CD11b, CD45, TMEM119 veya P2RY12'ye karşı antikorlar kullanılarak yapılan FACS tabanlı izolasyon yüksek saflık sağlar ancak pahalı ekipman gerektirir, zaman alıcıdır ve hücresel stresi artırır33,51. Ayrıca, manyetik boncuk tabanlı yöntemlere göre daha düşük hücre geri kazanımıyla sonuçlanır52. İmmunopanning oldukça spesifiktir ancak yine zaman alıcıdır, özel substrat hazırlığı gerektirir ve birden fazla bölgeden alınan dokuların işlenmesi için ölçeklenebilirliği düşüktür53. Ticari enzimatik dissosiyasyon kitleri tek hücre verimini artırabilir ve mekanik stresi azaltabilir, ancak daha pahalıdırlar ve proteaz aktivitesi aracılığıyla hücre yüzey belirteçlerini değiştirerek sonraki immünomanyetik veya akış sitometrisi adımları için etiketleme verimliliğini düşürebilirler54,55. Bu nedenle, bu protokol, özellikle CD11b, CD68 ve TMEM119 gibi hassas belirteçler için kritik olan yüzey antijenlerini korumak amacıyla ana dissosiyasyon adımı sırasında hafif enzimatik sindirim içerir. Burada kullanılan, CD3+ T hücresi depleksyonunu takip eden CD11b+ pozitif seleksiyonu şeklindeki kademeli immünomanyetik depleksyon-zenginleştirme yaklaşımı, tek adımlı protokollere göre gerçek bir iş akışı avantajı sunar. Bu yöntem, miyeloid fraksiyon saflığını maksimize ederken paralel immünolojik çalışmalar için T hücresi geri kazanımına olanak tanır. Bu ikili geri kazanım, özellikle CNS'deki hem T hücrelerinin hem de miyeloid hücrelerin incelenmesinin önemli olduğu HIV rezervuar araştırmalarında oldukça kullanışlıdır.
İzole edilen CD11b+ hücreleri, çeşitli araştırma uygulamaları için kullanılabilir. Viral rezervuarların incelenmesi için bu fraksiyon; HIV p24 antijeninin, droplet dijital PCR ile HIV DNA/RNA kopya sayısının ölçümü ve ex vivo viral büyüme deneyleri için uygundur56,57. Bunların tümü canlı, zenginleştirilmiş myeloid hücreler gerektirir ve ART'ye rağmen devam eden MSS rezervuarının anlaşılması için önemlidir58. Transkriptomik çalışmalar için, bu protokolle hazırlanan hücreler hem bulk hem de tek hücreli RNA sekileme için uygundur59,60. Bu, araştırmacıların mikroglia aktivasyonunu, hastalıkla ilişkili mikroglia imzalarını ve HIV enfeksiyonuna karşı mikroglia yanıtlarını tek hücre düzeyinde incelemesine olanak tanır61. Farklı seçim kitlerinin kullanılması ve gradyan hacimlerinin ayarlanması gibi küçük değişikliklerle, bu iş akışı; ölüm sonrası dokuların mikroglial analizine de ihtiyaç duyulan Alzheimer, multipl skleroz, uzun COVID19 ve travmatik beyin hasarı dahil olmak üzere diğer nörolojik hastalıklara uygulanabilir49,62.
Özetle bu protokol; insan ve hayvan beyin dokularından myeloid hücrelerin/mikrogliaların izole edilmesi için güvenilir, ölçeklenebilir, esnek ve tekrarlanabilir bir yöntem sunmaktadır. Birçok alt analiz platformuyla uyumlu olması ve tek bir doku örneğinden birden fazla immün hücre tipinin geri kazanımına olanak tanıması nedeniyle nöroimmünoloji, viroloji ve nöropatoloji alanındaki araştırmacılar için değerli bir araçtır.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
İnsan dokularını topladıkları için UC San Diego'daki “Last Gift” kohortundan Dr. Sara Gianella'ya teşekkür ederiz. Ayrıca rhesus macaque dokuları sağladıkları için Emory National Primate Research Center'dan Dr. Ann Chahroudi'ye, Oregon Health & Science University'den Dr. Afam Okoye'ye ve University of California, Davis'ten Dr. Satya Dandekar'a teşekkür ederiz. Bu çalışma R21MH128034, R01MH136852, R21AI167709, R01MH139446 ve R01AI186609 numaralı hibeler tarafından desteklenmiştir. Fon sağlayan kurumların çalışma tasarımı, veri toplama ve analiz, yayınlama kararı veya taslağın hazırlanmasında herhangi bir rolü olmamıştır.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 10 mL şırıngalar | VWR | Cat# 76837-040 | |
| 25 mL serolojik pipetler | VWR | Cat# 76201-710 | |
| ACK lizis tamponu | Thermo Fisher Scientific | Cat# A1049201 | |
| Antibiyotik-Antimikotik (100x) | Thermo Fisher Scientific | Cat# 15240112 | |
| autoMACS Durulama Solüsyonu | Miltenyi Biotec | Cat# 130-091-222 | |
| Biyogüvenlik kabini (BSL-2) | |||
| CD11b MicroBeads, insan ve fare – liyofilize | Miltenyi Biotec | Cat# 130-097-142 | |
| CD11b MicroBeads, insan dışı primat | Miltenyi Biotec | Cat# 130-091-100 | |
| CD3 MicroBead Kiti, insan dışı primat | Miltenyi Biotec | Cat# 130-092-012 | |
| Hücre sayım lamları | Thermo Fisher Countess | Cat# C10312 | Alternatif VWR, Cat# 10228-0050 |
| Clorox germisidal çamaşır suyu | Essendant | Cat# 50371500 | |
| Corning İşlem Görmemiş Kültür Kapları | Thermo Fisher Scientific | Cat# 08-772-32 | |
| Cynomolgus Maymun M-CSF | Kingfisher Biotech | Cat# RP1612Y-100 | |
| Luer-Lok uçlu tek kullanımlık şırıngalar | BD | Cat# 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | Cat# 11320082 | |
| DNase I, rekombinant, RNaz-free | Roche | Cat# 4716728001 | |
| EasySep Tamponu | STEMCELL Technologies | Cat# 20144 | |
| EasySep FITC Pozitif Seleksiyon Kiti II | STEMCELL Technologies | Cat# 17682 | |
| EasySep Release İnsan CD3 Pozitif Seleksiyon Kiti | STEMCELL Technologies | Cat# 17751 | |
| Falcon Hücre Süzgeçleri, 70 µm ve 100 µm | Corning | Cat# 21008-950 | |
| Fetal sığır serumu (FBS) | VWR | Cat#97068-091 | |
| İnce eğri pens | VWR | Cat# 82027-410 | |
| Gentamisin | Thermo Fisher Scientific | Cat# 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | Cat# 11875-119 | |
| HBSS, 1x kalsiyum, magnezyum ve fenol kırmızısı içermeyen | Thermo Fisher Scientific | Cat# 14175103 | |
| HBSS, 10x kalsiyum, magnezyum, fenol kırmızısı içeren | Thermo Fisher Scientific | Cat# 14060040 | |
| Hemositometre veya otomatik hücre sayıcı | |||
| İnsan M-CSF | PeproTech | Cat# 300-25 | alternatif Cat# 78057 |
| Manyetik ayırma için izotonik durulama/seyreltme solüsyonu | Miltenyi Biotec | 130-091-222 | |
| L-Glutamin (200 mM) | Thermo Fisher Scientific | Cat# 25030-061 | |
| MACS BSA Stok Solüsyonu (20x) | Miltenyi Biotec | Cat# 130-091-376 | |
| Manyetik ayırma sistemi | EasySep veya MACS | ||
| MS Kolonları | Miltenyi Biotec | Cat# 130-042-201 | |
| Penisilin-Streptomisin | hermo Fisher Scientific | Cat# 15140122 | |
| Percoll | Cytiva/GE Healthcare, | Cat# GE17-0891-01 | |
| Koruyucu önlükler | Kappler ProVent | Cat# 17-988-497B | |
| Soğutmalı santrifüj | |||
| Sodyum Pirüvat (100 mM) | Thermo Fisher Scientific | Cat# 11360070 | |
| Örnek pensi | VWR | Cat# 82027-440 | Alternatif Cat# 82027-438 |
| Steril tek kullanımlık skalpeller | Cardinal Health | Cat# 11213-237 | VWR-alternatifi Cat# 89140-800 |
| TrypLE Express Enzimi (1x), fenol kırmızısı | ThermoFisher | Cat# 1250510 |
Kaynaklar
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.