Bu protokol; ısı stresi, oksidatif stres, ER stresi ve mitokondriyal strese karşı tüm organizma düzeyindeki direncin değerlendirilmesi için adım adım prosedürleri açıklamaktadır. Ayrıca, nöronların stres direncinde rol oynayıp oynamadığını değerlendirme yöntemleri sunmaktadır.
Yöntem makalesi
Caenorhabditis elegans'da Çoklu Stresörlere Karşı Direncin Ölçülme Yöntemleri
Bu makalede
Özet
Özet
Organizmalar yaşamları boyunca çeşitli çevresel ve hücresel stresörlere maruz kalırlar. Farklı stresörlere karşı direnç gösterme kapasitesi, organizmaların sağlıklı yaşam süresi ve toplam yaşam süresi ile yakından ilişkilidir. Caenorhabditis elegans (C. elegans), stres direncinin altında yatan korunmuş moleküler mekanizmaların araştırılmasını kolaylaştırmak için stres direnci ölçümünde ideal bir model organizmadır. C. elegans ayrıca stres direncinin nöral temelini anlamak için temel teşkil eden basitleştirilmiş bir sinir sistemine sahiptir. Burada, C. elegans'ın dört farklı stres koşulu altındaki stres direncinin ölçüm yöntemlerini sunuyoruz: ısı stresi, endoplazmik retikulum (ER) stresi, mitokondriyal stres ve oksidatif stres. Solucan kohortları katı agar plaklarına yerleştirilir ve ısı stresi için zorlayıcı sıcaklıklara veya ER, mitokondriyal veya oksidatif stresi indükleyen farklı dozlardaki bileşikleri içeren agara maruz bırakılır. Bir örnek olarak, RIC nöronları ablate edilmiş bir suşun yabani tip suşa kıyasla stres direnci farklılıklarını belirlemek için her bir stres için artan dozlar belirledik ve optimal dozu titre ettik. Stres koşulları altında C. elegans sağkalımı saatlik veya günlük olarak izlenir ve farklı C. elegans suşlarındaki farklı stres direnci kapasitelerini belirlemek için sağkalım eğrileri çizilir ve karşılaştırılır. Bunlar; yabani tip, mutant veya nöronları manipüle edilmiş C. elegans suşlarında, bir dizi doz ve zaman ölçeğinde birden fazla stresöre karşı direncin değerlendirilmesi için tekrarlanabilir bir yaklaşım sağlar ve ayrıca birden fazla stresörün altında yatan moleküler ve nöral mekanizmaların ortaya çıkarılmasına yardımcı olur.
Giriş
Organizmalar yaşamları boyunca çeşitli çevresel streslere maruz kalırlar. Isı, hipoksi, radyasyon, oksidatif stres, ozmotik stres ve patojenik stres dahil olmak üzere çoğu stresör, hücre içi stres yanıtlarını tetikleyen hücresel disfonksiyona ve homeostaz dengesizliklerine neden olur. Organizmalar, dinamik çevresel zorluklarla ve stresörlerle başa çıkabilmek için yüksek düzeyde korunmuş stres yanıt yolakları geliştirmişlerdir. Bu korunmuş stres yanıt yolakları arasında ısı şoku yanıtları (HSR)1, endoplazmik retikulum (ER) ve mitokondrideki katlanmamış protein yanıtları (UPR)2 ve oksidatif stres yanıtı3 yer alır. Genellikle transkripsiyon faktörleri olan farklı stres yanıt yolaklarının ana düzenleyicileri, proteostazı yeniden sağlamak ve hücresel sağkalımı desteklemek için yanıt veren genlerin ekspresyonunu indükler4. Bu yanıtlar, yanlış katlanmış proteinleri yeniden katlayan şaperonların sentezini ve hasarlı proteinlerin protein yıkımı yoluyla uzaklaştırılmasını içerir4. Stres yanıtlarının aktive edilememesi, sitoplazmada veya organellerde hasarlı proteinlerin birikmesiyle sonuçlanır ve bu da hücresel ve dokusal disfonksiyona yol açar. Dengesiz hücresel stres yanıtı, nörodejenerasyondan metabolik sendroma kadar çeşitli kronik hastalıklarla ilişkilendirilmiştir5,6. Buna karşılık, stres yanıt yolaklarının uygun şekilde aktive edilmesi, sağlık süresinin iyileşmesine ve yaşam süresinin önemli ölçüde uzamasına yol açar7. Bu nedenle, sağlığın iyileştirilmesi için koruyucu stres yanıtından yararlanmak amacıyla stres direncinile ilgili moleküler mekanizmaları araştırmak önemlidir. Dolayısıyla, canlı hayvanlarda stres direncini kesin olarak ölçebilmek için tekrarlanabilir yöntem ve tekniklerin oluşturulması gereklidir.
Son 15 yıldaki keşifler, birçok türde stres direncinin artırılmasında nöral sinyalleşmenin bir rol oynadığını göstermiştir8. İlk bulgular, nöronlardaki HSR ve ER UPR'nin nöronal olmayan dokularda stres yanıtını aktive etmek için yeterli olduğunu göstermiş ve stres direncinin hücre dışı (cell non-autonomous) düzenlenmesi kavramını ortaya koymuştur8,9,10. Bu ilk keşiften bu yana, birçok stres direnci yolağının çevresel ipuçlarına yanıt verdiği ve nöral sinyalleşme aracılığıyla stres direncini artırdığına dair kanıtlar çoğalmıştır. Spesifik olarak; HSR10,11, ER UPR12,13, mitokondriyal açılmamış protein yanıtı (UPRmt) 14,15 ve oksidatif stres yanıtı3, her biri nöronlar aracılığıyla hücre dışı bir şekilde stres direncini artırmaktadır. Stres direncinin hücre dışı düzenlenme mekanizması, meyve sineği D. melanogaster16,17,18,19 ve fareler20,21 dahil olmak üzere organizmalar arasında korunmuştur.
Çoklu stresörler altında nöronların stres direncindeki rolünü inceleyen araştırmaları kolaylaştırmak amacıyla, burada nöronal olarak düzenlenen dört stresör altında direnci test etmek için sistematik bir protokol sunuyoruz: ısı stresi, ER stresi, mitokondriyal stres ve oksidatif stres. Bu dört stresöre karşı stres direncinin ölçülmesi için yönetilebilir bir model organizma olan C. elegans kullanılmıştır. Stres direnci analizlerinde C. elegans kullanımı, stres yanıtlarının aktivasyonunun yalnızca hücresel düzeyde değil, aynı zamanda organizma düzeyinde de incelenmesine olanak tanır.
Isı stresi, ER stresi, mitokondriyal stres ve oksidatif stres tarafından aktive edilen stres yanıt yolları, insanlar da dâhil olmak üzere organizmalar genelinde korunmuştur ve fonksiyonel olarak önemlidir22,23,24,25. Isı stresi, proteinlerin yanlış katlanmasına ve agregasyonuna yol açar ve protein homeostazının korunması için hayati öneme sahip olan ısı şoku yanıtını aktive eder26. C. elegans için fizyolojik ortam sıcaklığı 20 °C'dir ve 25 °C'nin üzerindeki daha sıcak sıcaklıklar C. elegans modelinde ısı stresini indükler27. Isı stresini 30 °C, 35 °C ve 37 °C olmak üzere üç farklı yüksek zorlayıcı sıcaklık altında indüklemekteyiz.
ER, protein sentezi ve katlanması için birincil bölgedir28. ER lümeni içerisinde katlanmamış veya yanlış katlanmış proteinlerin birikmesi, proteostazı yeniden sağlamak için katlanmamış protein yanıtlarını aktive eder29. ER stresi, N-bağlı glikozilasyonu bloke eden ve ER lümeninde yanlış katlanmış proteinlerin birikmesine neden olan kimyasal bir madde olan tunikamisin ile indüklenebilir 30. ER lümenindeki protein yanlış katlanma stresine karşı artan direnç, artmış bir sağkalım gösterir12. Solucanları farklı dozlarda tunikamisine (25–200 µg/mL) maruz bırakıyoruz ve sağkalımlarını ölçerek duyarlılıklarını değerlendiriyoruz.
Mitokondriler, hücresel metabolik merkez ve hücrenin "enerji santralleri"dir. Mitokondrilerdeki reaktif oksijen türleri (ROS) ve katlanmamış proteinler, mitokondriyal katlanmamış protein yanıtlarını tetikler ve mitokondriyal strese yol açar31. Mitokondriyal stres; elektron transferini engelleyen ve ROS üretimine neden olan bir mitokondriyal kompleks III inhibitörü olan antimisin A ile indüklenebilir32. Mitokondriyal stres direnç testi için optimal dozu belirlemek amacıyla farklı dozlarda antimisin A (5–80 µg/mL) kullanıyoruz.
Oksidatif stres genellikle çevresel toksinler ve metabolizma tarafından üretilen hücresel serbest radikaller tarafından indüklenir. Oksidatif stres, tüm organizmalarda proteinlere, lipidlere ve DNA'ya zarar verir33. Elektronları oksijene aktaran ve aşırı miktarda süperoksit radikali üreten bir herbisit kimyasalı olan Paraquat, güçlü bir oksidatif stres indükleyicisidir34. Artan dört paraquat dozu (2.5–20 mM) uyguluyoruz ve C. elegans'da 3 ila 12 günü kapsayan bir maksimum sağkalım aralığı gösteriyoruz.
Bu dört stres koşulu, C. elegans modellerinde yüksek derecede tekrarlanabilir stres direnci sonuçları elde etmek için oldukça kolaydır. Stres direnci yöntemleri daha önce rapor edilmiştir35,36,37,38,39,40. Farklı stresörleri ve sağkalım analizlerini özetleyen daha önce yayınlanmış bir derlemeye35 kıyasla, bu makale, tekrarlanabilir ve tutarlı stres analizleri gerçekleştirmek için detaylı, uygulanabilir ve adım adım protokoller oluşturmuştur. Daha önce yayınlanmış birçok protokol; ısı şoku36 veya oksidatif stres38 gibi tek bir spesifik stres analizine odaklanmışken; bu protokol ısı, ER, mitokondriyal ve oksidatif stres olmak üzere dört farklı stres analizinin tamamını göstermektedir. Daha önce rapor edilen stres analizi protokolleri ayrıca; ER, mitokondriyal ve oksidatif stres için yola özgü floresan transkripsiyonel raporlar40 veya ısı şoku yanıtı39 gibi farklı floresan rapor uç nokta analizleri sunmaktadır; buna karşılık bu protokol, C. elegans'ın genel sağlık durumunu etkili bir şekilde ölçmek için sağkalım analizlerini kullanmaktadır. Önemli bir nokta olarak, bu protokol, stres analizleri için seçilebilecek etkili doz aralığına referans sağlamak amacıyla dört analizin tamamı için doz titrasyonu sunmuştur; bu protokol farklı stres analizlerindeki zaman ölçeğini (saatlerden günlere) optimize etmiştir; ek olarak, nöronların stres direncini düzenleyip düzenlemediğini test etmek için bir örnek olarak, birden fazla stres yanıtını düzenleyen bir nöronun yeni bir rolünü sunduk.
Bir stres direnci deneyi geliştirmek, uygun bir stresörün ve güvenilir bir değerlendirme metriğinin seçilmesini gerektirir. C. elegans sağkalım deneyleri; yaşam süresi, stres direnci ve patolojik enfeksiyonlar dahil olmak üzere fizyolojik süreçlerin ölçülmesinde güçlü araçlar olmuştur. Sağkalım deneyleri için C. elegans kullanmanın temel avantajlarından biri, kendi kendilerini döllemeleri, geniş yavru sayıları ve yumurtadan genç yetişkinliğe kadar geçen üç günlük kısa gelişim döngüleri sayesinde, aynı yaştaki senkronize solucanların hazırlanmasının ve analiz edilmesinin kolay olmasıdır. Kültürlenmiş C. elegans popülasyonlarında erkekler nadir görülür ve bu nedenle, bu protokol de dahil olmak üzere sağkalım deneylerinde genellikle kullanılmazlar ve çoğunlukla genetik çaprazlamalar için kullanılırlar35. Diğer uç nokta değerlendirme yöntemleriyle (örneğin, floresan raporlayıcılar, protein ve lipid birikimi) karşılaştırıldığında, sağkalım deneyleri C. elegans'ın genel sağlık durumunu ölçmede etkilidir ve stresör dozuna bağlı olarak genellikle birkaç saatten birkaç haftaya kadar nispeten kısa bir sürede tamamlanır. Farklı C. elegans suşları arasında stres direncinin birincil göstergesi olarak sağkalım oranlarını kullanmaktayız. Sağkalım, motilite ve hafif mekanik stimülasyona verilen yanıt ile belirlenir; stimülasyona yanıt verilmemesi, C. elegans stres deneylerinde mortaliteyi tanımlamak için kullanılır. C. elegans sağkalım deneyleri, bakteriyel besin içeren katı veya sıvı besiyerlerinde gerçekleştirilebilir35. Ancak, sıvı besiyeri solucanların doğal yaşam alanı değildir ve solucanlar sıvı kültür içinde sürekli çırpınmaya zorlanır, bu da daha kısa bir sağkalım eğrisine yol açar41. Burada, farklı stresör konsantrasyonlarının vahşi tip ve nöronları ablate edilmiş mutant solucanların sağkalımı üzerindeki etkilerini değerlendirmek için katı besiyeri kullanıyoruz. Bu konsantrasyon-titrasyon verileri, benzer stres direnci deneyleri gerçekleştiren diğer araştırmacılar için yol gösterici olabilir.
Protokol
C. elegans içeren deneyler, Kansas State University, Manhattan, KS, ABD'de, kurumsal biyogüvenlik ve laboratuvar yönergelerine uygun olarak yürütülmüştür. C. elegans omurgasız bir model organizma olduğu için, bu çalışma için omurgalı hayvan etik kurulu onayı gerekmemiştir. Kullanılan tüm reaktiflerin, ekipmanların, yazılımların ve suşların ayrıntıları Materyal Tablosunda listelenmiştir.
1. NGM (Nematod Büyütme Besiyeri) plaklarının hazırlanması ve Escherichia coli OP50'nin hazırlanması
- NGM plaklarının hazırlanması
- 3 g NaCl, 17 g Agar (toz) ve 2,5 g Pepton tartın, 900 mL ultrapure deiyonize (dd) H2O ekleyerek son hacmi 1 L'ye tamamlayın ve otoklavda sterilize edin. Besiyerini 60 °C'lik bir su banyosunda yaklaşık 60 °C'ye kadar soğutun.
- 1 mL 1 M CaCl2 (ddH2O içinde hazırlanmış ve filtreyle sterilize edilmiş), 1 mL 5 mg/mL kolesterol (etanol içinde hazırlanmış ve filtreyle sterilize edilmiş), 1 mL 1 M MgSO4 (ddH2O içinde hazırlanmış ve filtreyle sterilize edilmiş) ve 25 mL 1 M KP Tamponu ekleyin.
KP Tamponu hazırlamak için, ddH2O içinde hazırlanmış 130 mL 1 M K2HPO4 ile 870 mL 1 M KH2PO4'ü birleştirin. İyice karıştırdıktan sonra pH'ı 6,0'ye ayarlayın. Hazırlama sonrası ölçülen pH genellikle 6,0'ye yakındır ve ek bir ayarlanmaya gerek yoktur. KP tamponu için kabul edilebilir pH aralığı 5,8–6,2 olup hedef pH 6,0'dir. Kullanmadan önce final pH'ın yaklaşık 6,0 olduğunu doğrulayın. Gerekiyorsa, 1 M K2HPO4 veya 1 M KH2PO4 kullanarak pH 6,0'ye ayarlayın. - İyice karıştırın ve besiyerini (NGM) plakalara (petri kapları) dökün. 60 mm'lik plakalar için plak başına 10 mL NGM besiyeri; 35 mm'lik plakalar için plak başına 3 mL NGM besiyeri dökün. Bakteriyel besin ekimi yapmadan önce NGM agar plaklarını düz bir tezgahta oda sıcaklığında (22–25 °C) en az 24 sa boyunca bekletin.
DİKKAT: Eriymiş NGM agar hazırlanırken ve dökülürken, yanıkları ve sıcak sıvıya maruz kalmayı önlemek için ısıya dayanıklı eldivenler ve uygun laboratuvar kişisel koruyucu donanımları (KKD) kullanın.
- Caenorhabditis elegans için Escherichia coli OP50 bakteri besininin hazırlanması
- Escherichia coli OP50 bakterilerini bir Luria-Bertani (LB) agar plağına çizin ve 37 °C'de gece boyunca inkübe edin (LB agar plakları: 100 mL ddH2O'ye 1 g NaCl, 1 g tryptone, 0,5 g maya ekstraktı ve 1,5-2,0 g agar tozu ekleyin, 20 dk boyunca otoklavda sterilize edin, 50-60 °C'ye soğutun ve besiyerini plakalara dökün. Temiz, düz bir tezgaha yerleştirin ve kurumaya bırakın).
- Tek bir koloniyi 100 mL sıvı LB besiyerine inoküle edin (LB besiyeri: 100 mL ddH2O'ye 1 g NaCl, 1 g tryptone ve 0,5 g maya ekstraktı ekleyin, 20 dk boyunca otoklavda sterilize edin. İnokülasyondan önce 37 °C'nin altına soğutun).
- Bakteri süspansiyonunun 10 katlık bir seyreltmesinde (100 µL bakteri süspansiyonunun 900 µL LB besiyeri ile karıştırılması) 600 nm'deki optik yoğunluk (OD600) yaklaşık 0,3'e ulaşana kadar bakterileri 37 °C'lik çalkalamalı inkübatörde kültüre edin. Bakteri süspansiyonunu hasat edin ve 4 °C'de saklayın. Bakteriyel besin, bir NGM plağına ekilmeden önce bir haftaya kadar saklanabilir40.
- OP50 bakterilerini NGM plaklarına ekmek için tekrarlayıcı bir pipetör kullanın. 60 mm'lik agar plakaları için 200 µL ve 35 mm'lik agar plakaları için 100 µL ekleyin. Ekim yapılmış NGM plaklarını kullanmadan önce düz bir tezgahta oda sıcaklığında (~22–25 °C) en az 24 sa boyunca bekletin. Plakaları oda sıcaklığında 48 sa'dan daha uzun süre bırakmayın. Ekim yapılmış plakaları temiz bir plastik kutuda düzenleyin ve 4 °C'de saklayın.
NOT: Havalandırmasız plaklar kullanılıyorsa, ekilen OP50'lerin kuruması daha uzun sürebilir.
DİKKAT: E. coli OP50 kültürlerini uygun mikrobiyolojik uygulamalarla işleyin; laboratuvar önlüğü, eldiven ve göz koruması kullanın. Çalışma yüzeylerini dezenfekte edin ve bakteriyel atıkları kurumsal biyogüvenlik prosedürlerine göre bertaraf edin.
2. C. elegans bakımı ve senkronizasyonu
Bu bölümün iş akışı Şekil 1A'da özetlenmiştir.
- Solucanları şu koşullarda muhafaza edin: 20 °C solucanların aç kalmasını önlemek için yetişkinler haftada iki kez OP50 ekili yeni NGM plakalarına aktarılarak, OP50 ekili NGM plakaları üzerinde tutulur. Platin tel uçlu bir toplama çubuğu kullanarak 20–40 adet gravid yetişkin solucanı taze OP50 ekili bir NGM plakasına yerleştirin ve orijinal plaktan gravid yetişkinlerle birlikte aktarılan tüm larva ve yumurtaları uzaklaştırın. Bilinen sayıda gravid solucanın kullanılması, kayıtların doğru tutulmasını kolaylaştırır ve sonraki adımda (bölüm 1.2) bunların tamamen uzaklaştırılmasını sağlar.
NOT: Vahşi tip bir suşun (N2) durumuna dayanarak, 2 saat içinde 80–120 yumurta üretmek için toplam 20–40 adet gravid solucan yeterlidir. Gravid yetişkinler yetişkinliğin ilk gününde (1. gün) olduğunda, yumurtlama optimal aşamadadır. Daha düşük veya daha yüksek fertiliteye sahip suşlar için gravid solucan sayısını buna göre ayarlayın. Bu adımın amacı, sonraki stres analizleri için senkronize solucanlara dönüşecek yeterli miktarda yumurta elde etmektir. - Yaklaşık 2 saat sonra, gravid solucanları plakadan çıkarın. Bu adımda çıkarılan gravid solucanların sayısını belirleyin ve plakaya yerleştirilen 20–40 gravid solucanın tamamının çıkarıldığını doğrulayın.
- Yumurta içeren plakaları şu sıcaklıkta inkübe edin: 20 °C stres analizleri için solucanlar geç L4 evresine gelene kadar. Yetişkin yaşı ve üreme durumundaki farklılıkların neden olduğu değişkenliği en aza indirmek için solucanları L4 evresinde senkronize edin12,35,37,38,40,42,43At 20 °Csolucanlar, tekdüze şekilde senkronize edilmiş geç L4 evresine ulaşır yaban tipi suşta, yumurtaların katı agar plakalarına bırakılmasından yaklaşık 54-58 saat sonra (gözlemimiz ve 36,40).
NOT: Gelişimsel gecikme gösteren suşlar için, senkronizasyon zamanlamasını spesifik gelişim hızlarına göre geç L4 evresine uygun şekilde ayarlayın.
DİKKAT: Uygulama/Kullanım C. elegans Uygun mikrobiyolojik uygulamaları takip edin; biyolojik materyale maruz kalmayı en aza indirmek ve kontaminasyonu önlemek için laboratuvar önlüğü ve eldiven kullanın.
3. Stres koşulu ve veri toplama
- Isı stresi deneyi
Bu bölümün iş akışı şurada özetlenmiştir Şekil 1B.- Solucanları geç L4 evresine senkronize edin (bölüm 2) ve şu koşullarda muhafaza edin: 20 °CSenkronize edilmiş L4 evresindeki solucanları, grup başına teknik tekrarlar olarak 4 plaka kullanacak şekilde ve plaka başına 30–35 solucan gelecek şekilde 35 mm'lik OP50 ekili NGM plakalarına (bölüm 1) aktarın. Biyolojik tekrarların kurulumu için bölüm 4'e bakın.
- Geç L4 evresindeki solucanların bulunduğu plakaları 30, 35 veya 37 °C inkübatör. Analiz edilen solucanların bulunduğu plakalar içeriye yerleştirilmeden önce inkübatörün ayarlanan sıcaklığa ulaştığından emin olun. 30, 35 veya 37 °C yaklaşık 4 saat ile 3 gün arasında değişmektedir (Şekil 2B–D) fizyolojik olarak stres uygulanmamış ortalama 20 günlük sağkalım süresine kıyasla (Şekil 2A).
KRİTİK ADIM: Tüm analiz plakalarını, agar tarafı aşağı gelecek şekilde tek bir katman halinde şuraya yerleştirin: 35 °C hızlı ve homojen sıcaklık dengelenmesini sağlamak için inkübatör.
NOT: 30, 35 veya... derecedeki ısı stresi analizleri sırasında 37 °Csolucanların çoğu yumurta bırakmaz. Yumurtaların bırakıldığı nadir vakalarda ise hiçbir yumurtanın açılmadığı gözlemlenmiştir. Bu nedenle, solucanların taze plakalara aktarılması gerekli değildir. - Her teknik tekrar plağının her zaman noktasındaki ölü solucan sayısını belirleyin ve bu sayıyı bir değerlendirme veri sayfasına kaydedin. Solucan sağkalımı, her saat başında şu koşullar altında değerlendirilir: 35 °C veya 37 °C ısı stresi ve günde bir kez uygulanan 30 °C ısı stresi. Puanlama, oda sıcaklığında bir diseksiyon mikroskobu altında gerçekleştirilir. Puanlama sırasında, inkübatörden yalnızca incelenmekte olan plakayı çıkarın; ısı stresine maruz kalma sürecindeki kesintileri en aza indirmek için diğer tüm plakalar belirlenen ısı stresi sıcaklığında kalmalıdır. Bu uygulama, tüm örnekler genelinde tutarlı deneysel koşulların korunmasına yardımcı olur.
KRİTİK ADIM: Isı stresine maruz kalma süresindeki kesintileri en aza indirmek için, her puanlama oturumunda her bir plakayı inkübatör dışında 3 dakikadan fazla tutmayın. Stres deneyi sırasındaki farklı zaman noktalarında solucanların hayatta kalma oranına bağlı olarak, bir plakanın oda sıcaklığında puanlanması genellikle yaklaşık 30 saniye ile 3 dakika arasında sürer. Manuel puanlama için harcanan süre göz önüne alındığında, puanlama sırası önem taşımaktadır. Tüm koşullardaki tüm teknik tekrarlar tamamlanana kadar, her koşuldan bir teknik tekrarın puanlanması şeklinde bir sıra izlemenizi öneririz. Örneğin, 4 teknik tekrar plakasına sahip üç koşul/grup (A, B ve C) olduğunda, puanlama sırasını şu şekilde düzenleyin: A1, B1, C1 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - Solucan sağkalımını şu kriterlere göre değerlendirin: Hafif fiziksel stimülasyona herhangi bir hareket yanıtı gözlemlenip gözlemlenmediği kontrol edilir. Aktif olarak hareket eden solucanlar canlı olarak puanlanır ve fiziksel stimülasyona gerek duyulmaz. Spontan hareket sergilemeyen solucanlar için, platin tel bir pik yardımıyla vücudun posterior bölgesine iki kez hafifçe dokunarak stimülasyon uygulayın. Hareket yanıtının yokluğu ölüm olarak kaydedilir ve ölü solucan, kaydedildikten sonra plakadan uzaklaştırılır. Her dokunuştan sonra yaklaşık 2 saniyelik bir gözlem, hareket yanıtının olup olmadığını belirlemek için yeterlidir. Sayım sırasında canlı ve ölü solucan sayısını kaydetmek ve sayım hatalarını azaltmak için el tipi bir sayıcı kullanılması önerilir. Tüm solucanların yalnızca bir kez sayıldığından ve tekrarlanmadığından emin olmak için, plağın altına ızgaralı şeffaf bir plastik levha yerleştirin veya plakaları sayım için bölümlere ayırmak amacıyla plağın altına bir ızgara çizin.
NOT: Puanlama işleminden hemen sonra plakaları ısı kondisyon inkübatörüne geri yerleştirin. - Tüm hayvanlar ölene veya önceden tanımlanmış kriterlere göre sansürlenene kadar solucan sağkalımını düzenli aralıklarla izleyin. Kaydedilen sağkalım verilerini derleyin ve bunları sonraki analizler için sağkalım eğrileri oluşturmak amacıyla kullanın.
- ER stres analizi
Bu bölümün iş akışı şurada özetlenmiştir Şekil 1C.- ER stres deneyi ortam plakalarını hazırlayın. Tunicamycin stok çözeltisi (dimetil sülfoksit (DMSO) içinde 10 mg/mL, –'de saklanan) ekleyin.20 °C) sıvı NGM ortamına (bölüm 1.1.2'den) 25, 50, 100 veya son konsantrasyona gelecek şekilde 200 µg/mLÖrneğin, 1 L ER stres analiz ortamı için, 25, 50, 100 veya 20 μM nihai konsantrasyonlara ulaşmak amacıyla 2,5, 5, 10 veya 20 mL tunikamisin stok çözeltisi (DMSO içinde 10 mg/mL) ekleyin. 200 µg/mL besiyeri plaklarındaki tunicamycin. Eğer deneye işlem görmemiş kontrol grubu dahil edilmişse, ilgili kontrol besiyerine aynı miktarda DMSO (2,5, 5, 10 veya 20 mL) ekleyin.
KRİTİK ADIM: Otoklavlanmış NGM besiyerini yaklaşık olarak soğutun 55 °C karıştırırken, tunicamycin'i istenen son konsantrasyona kadar ekleyin. Her bir 35 mm'lik plakaya tunicamycin içeren 3 mL NGM besiyerini dökmeden önce iyice karıştırın. Her bir 35 mm'lik agar plağına şunları ekin: 100 µL OP50 bakterileri (bölüm 1.2). Tünikamisin içeren OP50 ekili NGM plakaları şu koşullarda saklanabilir: 4 °C kullanımdan önce bir haftaya kadar.
DİKKAT: Tunicamycin tehlikelidir; laboratuvar önlüğü, eldiven ve göz koruması kullanılarak kimyasal çeker ocak içerisinde çalışılmalıdır. Solunmasından ve cilt veya gözle temasından kaçının. - Solucanları geç L4 evresine senkronize edin (bölüm 2) ve şu koşullarda tutun: 20 °CSenkronize L4 evresindeki solucanları, grup başına teknik tekrarlar olarak 4 plaka kullanacak şekilde, plaka başına 30–35 solucan olacak şekilde tunikamisini içeren 35 mm'lik OP50 ekili NGM plakalarına aktarın. Biyolojik tekrarların kurulumu için Bölüm 4'e bakınız.
- Tüm plakları şu sıcaklıkta inkübe edin: 20 °CÖlü solucan sayısı günlük olarak kaydedin. 25, 50, 100 veya... altında yabani tip solucanların ortalama sağkalım oranı 200 µg/mL tunicamisin için bu süre yaklaşık 8 ila 11 gün arasındadır (Şekil 2E,F) fizyolojik olarak stres altında olmayan yaklaşık 20 günlük ortalama sağkalım süresine kıyasla (Şekil 2A).
NOT: Tunicamisinle indüklenen ER stres analizinde, tunicamisin içeren agar plaklarında yumurta bırakılır ancak bu yumurtalar açılmaz. Bu nedenle, solucanların taze plakalara aktarılmasına gerek yoktur. - Her gün her bir teknik replika plakasındaki ölü solucan sayısını belirleyin ve bu sayıyı bir skorlama veri sayfasına kaydedin. Skorlama işlemi, oda sıcaklığındaki tezgah üzerinde, bir diseksiyon mikroskobu altında manuel olarak gerçekleştirilir. Aktif olarak hareket eden solucanlar canlı olarak skorlanır ve herhangi bir fiziksel stimülasyona gerek duyulmaz. Spontan hareket sergilemeyen solucanlar için, platin tel bir prob ile vücudun posterior bölgesine iki kez dokunarak solucanları nazikçe stimüle edin. Yanıtsızlık durumu ölüm olarak kaydedilir ve ölü solucan, kaydedildikten sonra plakadan uzaklaştırılır. Doğru sayım yapıldığından emin olmak için bir el sayacı kullanılması önerilir. Tüm solucanların yalnızca bir kez sayılmasını ve tekrarlanmamasını sağlamak için, plakayı sayım için ızgara bölümlerine ayırmak amacıyla plakanın altına ızgaralı şeffaf bir plastik levha yerleştirin veya plakanın altına bir ızgara çizin.
NOT: Puanlama işleminden hemen sonra plakaları inkübatöre geri yerleştirin. Bir sonraki puanlamadan önce solucanları yaklaşık 24 saat boyunca inkübatörde tutun. - Tüm hayvanlar ölene veya önceden belirlenmiş kriterlere göre sansürlenene kadar solucan sağkalımını günlük olarak izleyin. Kaydedilen sağkalım verilerini derleyin ve bunları sonraki analizler için sağkalım eğrileri oluşturmak amacıyla kullanın.
- ER stres deneyi ortam plakalarını hazırlayın. Tunicamycin stok çözeltisi (dimetil sülfoksit (DMSO) içinde 10 mg/mL, –'de saklanan) ekleyin.20 °C) sıvı NGM ortamına (bölüm 1.1.2'den) 25, 50, 100 veya son konsantrasyona gelecek şekilde 200 µg/mLÖrneğin, 1 L ER stres analiz ortamı için, 25, 50, 100 veya 20 μM nihai konsantrasyonlara ulaşmak amacıyla 2,5, 5, 10 veya 20 mL tunikamisin stok çözeltisi (DMSO içinde 10 mg/mL) ekleyin. 200 µg/mL besiyeri plaklarındaki tunicamycin. Eğer deneye işlem görmemiş kontrol grubu dahil edilmişse, ilgili kontrol besiyerine aynı miktarda DMSO (2,5, 5, 10 veya 20 mL) ekleyin.
- Mitokondriyal stres analizi
Bu bölümün iş akışı şurada özetlenmiştir: Şekil 1D.- Mitokondriyal stres analizi besiyeri plakları hazırlayın. Antimisin A stok çözeltisini ekleyin (DMSO içerisinde 5 mg/mL, –de saklanan)20 °C) sıvı NGM besiyerine (bölüm 1.1.2'den) 5, 10, 20, 40 veya son konsantrasyona ulaşacak şekilde 80 µg/mLÖrneğin, 1 L mitokondriyal stres deneyi besiyerine 1, 2, 4, 8 veya 16 mL antimycin A stok çözeltisi (DMSO içinde 5 mg/mL) ekleyin. 5, 10, 20, 40 veya ... final konsantrasyonu için 80 µg/mL besiyeri plaklarına antimisin A ekleyin. Deneyde işlem görmemiş kontrol grubu yer alıyorsa, ilgili kontrol besiyerine aynı miktarda DMSO (1, 2, 4, 8 veya 16 mL) ekleyin.
KRİTİK ADIM: Otoklavlanmış NGM besiyerini yaklaşık olarak soğutun 55 °C karıştırırken istenen nihai konsantrasyona ulaşana kadar antimisin A ekleyin. Antimisin A içeren NGM besiyerinden 3 mL'yi her bir 35 mm'lik plağa dökmeden önce iyice karıştırın. Her bir 35 mm'lik agar plağına şunları ekleyerek ekim yapın: 100 µL OP50 bakterileri (bölüm 1.2). Antimisin A içeren OP50 ekili NGM plakları şurada saklanabilir 4 °C kullanımdan önce bir haftaya kadar.
DİKKAT: Antimycin A tehlikelidir; laboratuvar önlüğü, uygun eldivenler ve göz koruması takılıyken kimyasal çeker ocak içerisinde işlem yapılmalıdır. Solumaktan ve cilt veya gözle temasından kaçının. - Solucanları geç L4 evresine senkronize edin (bölüm 2) ve onları şu değerde tutun 20 °CSenkronize L4 evresindeki solucanları, grup başına teknik tekrarlar olarak 4 plaka kullanacak şekilde ve plaka başına 30–35 solucan düşecek şekilde, antimisin A içeren 35 mm OP50 ekili NGM plakalarına aktarın. Biyolojik tekrarların kurulumu için Bölüm 4'e bakın.
- Tüm plakaları şu sıcaklıkta inkübe edin: 20 °CÖlü solucan sayısı günlük olarak kaydedin.
KRİTİK ADIM: Yumurta açılma ve larva gelişimi sorunları nedeniyle, ilk 10 gün boyunca solucanları her iki günde bir taze plakalara aktarın. Plakada artık yeni larva veya yumurta gözlemlenmediğinde aktarma işlemini durdurun. Tüm teknik tekrarlar aynı sayıda aktarma işlemine tabi tutulmalıdır. Örneğin, yalnızca bir plakanın aktarılması gerektiğinde, bu biyolojik tekrardaki tüm plakalar aynı anda aktarılmalıdır. 5, 10, 20, 40 veya [X] [birim] altındaki vahşi tip solucanların ortalama sağkalımı... 80 µg/mL antimycin A için bu süre yaklaşık 1,5 ile 5 gün arasında değişmektedir (Şekil 2G,H) fizyolojik olarak stres uygulanmamış yaklaşık 20 günlük ortalama sağkalım süresine kıyasla (Şekil 2A).
NOT: Antimycin A ile indüklenen mitokondriyal stres analizi, ilk 10 gün boyunca solucanların iki günde bir taze plaklara aktarılmasını gerektirir. Aktarma işlemi, aşırı yoğunlaşmayı ve açlığı önlemek ve deney solucanlarını kendi döllerinden ayırt etmek için gerçekleştirilir. - Her gün her bir teknik replika plakasındaki ölü solucan sayısını belirleyin ve sayıyı bir değerlendirme veri formuna kaydedin. Değerlendirme, oda sıcaklığında, tezgah üzerinde bir diseksiyon mikroskobu altında manuel olarak gerçekleştirilir. Aktif olarak hareket eden solucanlar canlı olarak kaydedilir ve herhangi bir fiziksel stimülasyona gerek duyulmaz. Spontan hareket göstermeyen solucanlar için, platin tel bir prob ile vücudun posterior bölgesine iki kez dokunarak solucanları nazikçe stimüle edin. Yanıt alınamaması durumunda solucan ölü olarak kaydedilir ve kayıt işleminden sonra plakadan uzaklaştırılır. Doğru sayım yapıldığından emin olmak için el tipi bir sayaç kullanılması önerilir. Tüm solucanların yalnızca bir kez sayıldığından ve mükerrer sayım yapılmadığından emin olmak için plakanın altına kareli şeffaf bir plastik levha yerleştirin veya bir ızgara çizin. sayım yapmak için plakaları ızgara bölümlerine ayırmak amacıyla plakanın altına.
NOT: Puanlama işleminden hemen sonra solucanları inkübatöre geri yerleştirin. Bir sonraki puanlamadan önce solucanları yaklaşık 24 saat boyunca inkübatörde tutun. - Tüm hayvanlar ölene veya önceden tanımlanmış kriterlere göre sansürlenene kadar solucan sağkalımını günlük olarak izleyin. Kaydedilen sağkalım verilerini derleyin ve bunları sonraki analizler için sağkalım eğrileri oluşturmak amacıyla kullanın.
- Mitokondriyal stres analizi besiyeri plakları hazırlayın. Antimisin A stok çözeltisini ekleyin (DMSO içerisinde 5 mg/mL, –de saklanan)20 °C) sıvı NGM besiyerine (bölüm 1.1.2'den) 5, 10, 20, 40 veya son konsantrasyona ulaşacak şekilde 80 µg/mLÖrneğin, 1 L mitokondriyal stres deneyi besiyerine 1, 2, 4, 8 veya 16 mL antimycin A stok çözeltisi (DMSO içinde 5 mg/mL) ekleyin. 5, 10, 20, 40 veya ... final konsantrasyonu için 80 µg/mL besiyeri plaklarına antimisin A ekleyin. Deneyde işlem görmemiş kontrol grubu yer alıyorsa, ilgili kontrol besiyerine aynı miktarda DMSO (1, 2, 4, 8 veya 16 mL) ekleyin.
- Oksidatif stres analizi
Bu bölümün iş akışı şurada özetlenmiştir: Şekil 1E.- Oksidatif stres analiz ortamı plakaları hazırlayın. Paraquat stok çözeltisi (ddH2O içinde 0,5 M) ekleyin.2O, –'de saklanır20 °C) sıvı NGM besiyerine (bölüm 1.1.2'den), 2,5, 5, 10 veya 20 mM nihai konsantrasyona gelecek şekilde ekleyin.
KRİTİK ADIM: Otoklavlanmış NGM besiyerini yaklaşık olarak soğutun 55 °C karıştırırken paraquat'ı istenen son konsantrasyona ulaşana kadar ekleyin. Paraquat içeren NGM besiyerinden 3 mL'yi 35 mm'lik plaklara dökmeden önce iyice karıştırın. Her bir 35 mm'lik agar plağına şunları ekleyin: 100 µL OP50 bakterileri (bölüm 1.2). OP50 bakterileri, analiz zamanından 2-3 gün önce ekilebilir. Paraquat içeren OP50 ekili NGM plakaları şurada saklanabilir 4 °C kullanımdan önce bir haftaya kadar.
DİKKAT: Paraquat yüksek derecede toksiktir; uygun eldivenler, laboratuvar önlüğü ve göz koruyucu ekipman kullanılarak kimyasal çeker ocak içerisinde çalışılmalıdır. Solunmasından, yutulmasından, cilt veya gözle temasından kaçının. - Solucanları geç L4 evresinde senkronize edin (bölüm 2) ve şu koşullarda tutun: 20 °CSenkronize L4 evresindeki solucanları, grup başına teknik tekrarlar olarak 4 plaka kullanacak şekilde, plaka başına 30–35 solucan düşecek şekilde paraquat içeren 35 mm'lik OP50 ekili NGM plakalarına aktarın. Biyolojik tekrarların kurulumu için bölüm 4'e bakınız.
- Tüm plakları şu sıcaklıkta inkübe edin: 20 °CÖlü solucan sayısı günlük olarak kaydedin. 2,5, 5, 10 veya 20 mM paraquat altındaki vahşi tip solucanların ortalama sağkalım süresi yaklaşık 2,5 ila 5 gün arasında değişmektedir (Şekil 2I,J), fizyolojik olarak stres altında olmayan yaklaşık 20 günlük ortalama hayatta kalma süresine kıyasla (Şekil 2A).
NOT: Paraquat ile indüklenen oksidatif stres analizinde, solucanların taze plakalara aktarılmasına gerek yoktur. Paraquat plakalarında sınırlı sayıda larva bulunur ve bunlar analiz boyunca L2 evresinde veya öncesindeki gelişim evresinde duraklar. Bu larvalar, senkronize kohortların tanımlanmasına engel olmaz veya açlığa neden olmaz. Solucan aktarımıyla oluşabilecek fiziksel stres göz önüne alındığında, analiz sırasında solucanların aktarılması önerilmez. - Her gün, her bir teknik replika plağındaki ölü solucan sayısını belirleyin ve bu sayıyı bir veri kayıt formuna kaydedin. Sayım işlemi, oda sıcaklığındaki tezgahta, bir diseksiyon mikroskobu altında manuel olarak gerçekleştirilir. Aktif olarak hareket eden solucanlar canlı olarak sayılır ve herhangi bir fiziksel stimülasyona gerek duyulmaz. Spontan hareket sergilemeyen solucanlar için, platin tel bir prob ile vücudun posterior bölgesine iki kez hafifçe dokunarak stimülasyon uygulayın. Yanıtsızlık durumu ölüm olarak kaydedilir ve ölü solucan, kaydedildikten sonra plaktan uzaklaştırılır. Doğru sayım yapıldığından emin olmak için bir el sayacı kullanılması önerilir. Tüm solucanların yalnızca bir kez sayıldığından ve tekrarlanmadığından emin olmak için, plağın altına ızgaralı şeffaf bir plastik levha yerleştirin veya sayım için plakları ızgara bölümlerine ayırmak amacıyla plağın altına bir ızgara çizin.
NOT: Solucanları puanlamadan hemen sonra inkübatöre geri yerleştirin. Bir sonraki puanlamadan önce solucanları yaklaşık 24 saat boyunca inkübatörde tutun. - Tüm hayvanlar ölene veya önceden belirlenmiş kriterlere göre sansürlenene kadar solucan sağkalımını günlük olarak izleyin. Kaydedilen sağkalım verilerini derleyin ve bunları sonraki analizler için sağkalım eğrileri oluşturmak amacıyla kullanın.
- Oksidatif stres analiz ortamı plakaları hazırlayın. Paraquat stok çözeltisi (ddH2O içinde 0,5 M) ekleyin.2O, –'de saklanır20 °C) sıvı NGM besiyerine (bölüm 1.1.2'den), 2,5, 5, 10 veya 20 mM nihai konsantrasyona gelecek şekilde ekleyin.
4. Veri analizi
- Her zaman noktasında, her teknik replika plakasındaki ölü solucan sayısını kaydedin. Mortalite verileri; zaman noktası (stres koşulunun başlangıcından sonraki saatler veya günler), deney grubu (farklı suşlar veya farklı tedavi koşulları) ve teknik replika (plaka 1, 2, 3 veya 4) şeklinde düzenlenen bir puanlama sayfasına kaydedilir. Her puanlama aralığında (analize bağlı olarak saatlik veya günlük), ölü solucan sayısı her plaka için ayrı ayrı kaydedilir ve analiz tamamlanana kadar kümülatif mortalite takip edilir.
- Her puanlama zaman noktasından elde edilen mortalite verilerini, Kaplan–Meier sağkalım eğrisi oluşturma ve log-rank istatistiksel analizi için OASIS 2 (online application for survival analysis 2)44 sistemine girin. Alternatif olarak mortalite, münferit zaman noktalarındaki ölü solucanların yüzdesi olarak hesaplanabilir ve gruplar arasında eşleştirilmemiş iki kuyruklu Student's t-testi (iki grup için) veya tek yönlü ANOVA ve ardından Tukey çoklu karşılaştırma testi (üç veya daha fazla grup için) kullanılarak karşılaştırılabilir.
NOT: Genel sağkalımı yansıtmak için, rüptür veya matrisidal çıkış (torbalanma) sergileyen solucanlar, gözlemlendikleri anda ölü olarak puanlanır. Rüptür olmuş ve torbalanmış solucanlar, aşağıdaki temsili sonuçlarda raporlanan sağkalım eğrilerine dahil edilmiştir. Farklı koşullardan kaynaklanan sansürlenmiş solucan sayıları Ek Tablo 1'de kaydedilmiştir. Analiz plakasından kaçan, plaka duvarında kuruyan veya puanlama sırasında eksik olan solucanlar sansürlenmiş gözlemler olarak değerlendirilir ve sonraki sağkalım analizinden hariç tutulur. Hareketleri bozulmuş ancak hafif dokunuşa yanıt veren hayvanlar canlı olarak puanlanır. Analizin başlangıcından önce yumurta bırakma kusurları sergileyen solucanlar sağkalım analizinden hariç tutulur. - Tüm stres analizlerini, farklı günlerde gerçekleştirilen en az üç bağımsız biyolojik replikada yürütün. Her biyolojik replika, solucan içeren dört teknik replika plakadan oluşur. Bir biyolojik replika içindeki teknik replikalardan gelen veriler, tek bir sağkalım eğrisi oluşturmak için havuzlanır. Bağımsız biyolojik replikalar ayrı ayrı analiz edilir ve havuzlanmak yerine bireysel veri setleri olarak sunulur. Her biyolojik replika, bağımsız olarak hazırlanmış besiyerleri ve stres indükleyici bileşiklerin taze partileri kullanılarak gerçekleştirilir. Yukarıda açıklanan protokoller, her stres analizi için bir biyolojik replika oluşturma adımlarıdır. Erkekler hariç tutulmuştur ve bu protokolde yalnızca hermafroditler dahil edilip analiz edilmiştir.
NOT: Bu protokoldeki inkübatörlerin nemi kontrol edilmezken, inkübatör sıcaklığı deneysel sıcaklıkta kesin olarak kontrol edilir. Burada raporlanan deneyler körleme koşulları altında gerçekleştirilmemiştir ve deney yapan kişi puanlama sırasında genotipten ve tedavi koşullarından haberdardı. Potansiyel puanlama yanlılığını en aza indirmek için mümkün olduğunda genotip ve tedavi koşullarının körlenmesi önerilir.
Sonuçlar
Yukarıda açıklanan protokolleri kullanarak, öncelikle ısı, ER, mitokondriyal ve oksidatif stres olmak üzere dört stres faktörünün tamamının artan dozları altında solucan sağkalımını incelemek için vahşi tip (WT) N2 solucanları kullandık. Ardından, bir internöron olan RIC'nin stres direncindeki rolünü WT solucanlarla karşılaştırmak için bir nöron ablasyon suşu kullandık.
RIC ablasyon suşunda ısı stresi dozunun titrasyonu ve ısı stresi direncinin karşılaştırılması
fizyolojik sıcaklık altında 20 °C, WT solucanlar ortalama 20,67 gün yaşam süresine sahiptir (Şekil 2A). Bölüm 3.1'de sunulan ısı stresi deneyi adımlarını takiben, 30, 35 ve yükseltilmiş sıcaklıklar altında WT sağkalımını ölçtük 37 °C artan dozlarda ısı stresine maruz kaldıklarında. Veriler, WT solucanların şu durumda ortalama 3,11 günlük bir yaşam süresine sahip olduğunu göstermiştir: 30 °C (Şekil 2B); ve WT solucanlar şu durumda ortalama 5,36 saatlik bir sağkalım süresine sahiptir: 35 °C ve 4,89 sa boyunca 37 °C (Şekil 2C). Bu sonuçlar, yüksek sıcaklıklarda sağkalımın anlamlı derecede azaldığını göstermiştir. İstatistiksel analizler ve P değerler ayrıntılı olarak sunulmuştur Ek Tablo 2 ve şekil açıklamaları. Bu veriler, araştırmacıların bir ısı stresi deneyi tasarlarken optimal stres sıcaklığını ve zaman ölçeğini seçmeleri için güvenilir bilgiler sağlar. Araştırmacılar şunları kullanabilir 30 °C kullanırken solucanların birkaç gün boyunca sağkalımını incelemek için 35 °C veya 37 °C birkaç saat içinde solucan sağkalımının daha hızlı bir şekilde değerlendirilmesini sağlamak için.
Daha sonra, RIC nöron ablasyonunun sağkalım üzerindeki etkisini WT hayvanlarla karşılaştırarak değerlendirmek için ısı stresi koşulu olarak 35 °C kullandık. Bu sıcaklık, 37 °C'nin aşırı şiddetinden kaçınırken 30 °C'den daha güçlü bir yanıt oluşturarak orta düzeyde bir ısı stresi sağlar ve yaklaşık 12 h içinde eksiksiz bir sağkalım analizi ile sonuçlanır.
RIC nöronları, C. elegans'in baş bölgesinde yer alan bir çift oktopaminerjik internörondur9,10. RIC nöronları ablate edilmiş suş, tbh-1 gen promotörü tarafından yönlendirilen caspase-3 geninin eksprese edilmesiyle oluşturulmuş ve daha önce kullanılmıştır45. Kısaca, mec-18 promotörünün yerini almak üzere tbh-1 promotörü, mec-18p::caspase-3 (p12)::nz ve mec-18p cz::caspase-3 (p17) donör plazmitlerine yerleştirilmiştir. RIC genetik ablasyon suşlarını oluşturmak için tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) ve tbh-1p::GFP (RIC nöronlarının ablate edilip edilmediğini belirten bir RIC nöronu markörü olarak, 20 ng/µL) olmak üzere üç konstrükt, floresan ko-enjeksiyon markörü myo-3p::GFP (5 ng/µL) ile birlikte yaban tipi N2 suşuna ko-enjekte edilmiştir. Bağımsız olarak enjekte edilen üç hat, RIC nöron ablasyon suşu olarak korunmuştur. Transgenik hatlar, floresan myo-3p::GFP markörüne sahip solucanlar seçilerek sürdürülmüştür. Her stres deneyinin sonuçları, iki veya üç bağımsız hat ile doğrulanmıştır. RIC nöronlarının başarılı ablasyonu, RIC nöronları ablate edilmiş suşta tbh-1p::GFP floresansının yokluğu ile doğrulanırken, tbh-1p::GFP reporter kontrol suşunun RIC nöronlarında GFP ekspresyonu gözlemlenmiştir (Ek Şekil 1).
Bölüm 3.1'de sunulan ısı stresi deneyi basamaklarını kullanarak, hem WT hem de RIC nöronları ablate edilmiş suşların 35 °C ısı stresi altındaki sağkalımlarını inceledik (Şekil 2D). Bölüm 4.1–4.3'te sunulan Veri analizi basamakları kullanıldığında, sonuçlar 35 °C ısı stresi altında RIC nöronları ablate edilmiş suş ile vahşi tip N2 kontrol grubu arasında anlamlı bir fark bulunmadığını göstermiştir (Şekil 2D).
Isı stresi deneylerinden elde edilen tüm temsili sonuçlar, farklı günlerde gerçekleştirilen üç bağımsız biyolojik tekrar ile elde edilmiştir (Ek Şekil 2). Şekil açıklamalarında belirtilen hayvan sayısı (n değeri) katkıda bulunan Temsili sonuçlarda ve ek şekillerde gösterilen sağkalım eğrisindeki veriler, tek bir biyolojik tekrardaki dört teknik tekrardan elde edilen havuzlanmış sayıdır.
ER stres dozajının titrasyonu ve RIC ablasyon suşunda ER stres direncinin karşılaştırılması
Bölüm 3.2'de sunulan ER stres analiz basamaklarını kullanarak, 25, 50, 100 veya 200 µg/mL artan dozlarda ER stresini artıran tunikamisin (Şekil 2E). Fizyolojik olarak stres uygulanmamış yaklaşık 20 günlük ortalama sağkalıma kıyasla (Şekil 2A), yabani tip solucanların ortalama sağkalım süresi şurada 10,74 gündür 25 µg/mL, 9,13 gün boyunca 50 µg/mL, 9,3 gün boyunca 100 µg/mLve 8,93 gün boyunca 200 µg/mL tunikamisin (Şekil 2E). Tunikamisin dozundaki artış, bu dozlar altındaki sağkalımı anlamlı düzeyde değiştirmedi. İstatistiki analizler ve P değerler ayrıntılı olarak şurada sunulmuştur Ek Tablo 2 ve şekil açıklamaları. Bu veriler, araştırmacıların bir ER stres analizinde optimal tunikamisin dozunu seçebilmeleri için güvenilir bilgiler sağlar.
Ardından, RIC nöron ablasyonunun sağkalım üzerindeki etkisini WT hayvanlarla karşılaştırarak değerlendirmek amacıyla, test edilen dozlar arasında orta düzeyde bir doz olan 50 µg/mL tunikamisin ER stres koşulu olarak kullanılmıştır. Bölüm 3.2'de sunulan ER stres analizi adımları kullanılarak, hem WT hem de RIC nöronları ablate edilmiş suşların 50 µg/mL tunikamisin ile indüklenen ER stres altındaki sağkalımı incelenmiştir (Şekil 2F). Bölüm 4.1–4.3'te sunulan Veri analizi adımları kullanıldığında, RIC nöronları ablate edilmiş suşun sağkalım eğrisi, WT N2 kontrolüne kıyasla belirgin bir sağa kayma göstermiş ve bu durum ER stres altında uzamış sağkalıma işaret etmiştir. Bu sonuç, RIC nöronlarının ablasyonunun ER stres direncini artırdığını göstermektedir (Şekil 2F).
ER stres analizlerinden elde edilen tüm temsili sonuçlar, farklı günlerde gerçekleştirilen üç bağımsız biyolojik tekrar ile elde edilmiştir (Ek Şekil 3)Katkıda bulunan hayvan sayısı (şekil açıklamalarında belirtilen n değeri) Temsili sonuçlarda ve ek figürlerde gösterilen sağkalım eğrisi, tek bir biyolojik replikadaki dört teknik replikadan elde edilen birleştirilmiş sayıya dayanmaktadır.
Mitokondriyal stres dozajının titrasyonu ve RIC ablasyon suşunda mitokondriyal stres direncinin karşılaştırılması
Bölüm 3.3'te sunulan mitokondriyal stres deneyi adımlarını kullanarak, WT sağkalımını 5, 10, 20, 40 veya 80 µg/mL mitokondriyal stresin artan dozları olarak antimisin A (Şekil 2G). WT solucanların sağkalım eğrileri, doza bağımlı şekilde anlamlı değişiklikler göstermiştir. Fizyolojik olarak stres altında olmayan yaklaşık 20 günlük ortalama sağkalım süresiyle karşılaştırıldığında (Şekil 2A), yabani tip solucanların ortalama sağkalım süresi şu değerdedir: 4,96 gün 5 µg/mL, 3,77 gün boyunca 10 µg/mL, 2,68 gün boyunca 20 µg/mL, 1,65 gün boyunca 40 µg/mLve 1,4 gün boyunca 80 µg/mL antimisin A (Şekil 2G). İstatistiksel analizler ve P değerler ayrıntılı olarak sunulmuştur Ek Tablo 2 ve şekil açıklamaları. Bu veriler, araştırmacıların bir mitokondriyal stres deneyi tasarlarken optimal antimisin A dozunu ve zaman ölçeğini seçmeleri için güvenilir bilgiler sağlar. Araştırmacılar seçebilir 5 µg/mL yaklaşık 10 gün boyunca solucan sağkalımını değerlendirmek için veya birkaç gün içinde sağkalım sonuçları elde etmek için daha yüksek antimisin A konsantrasyonları kullanın. Daha yüksek konsantrasyonların mortaliteyi hızlandırdığını, daha düşük konsantrasyonların ise sağkalımda daha kademeli bir düşüş oluşturarak suşlar arasındaki ince farkların daha kolay ayırt edilmesine olanak tanıdığını unutmayın.
Ardından, 5 µg/mL daha fazla [etki/sonuç] üreten antimisin A, RIC nöron ablasyonunun sağkalım üzerindeki etkisini WT hayvanlarla karşılaştırarak değerlendirmek amacıyla, test edilen dozlar arasında sağkalımda kademeli bir düşüş görülen mitokondriyal stres koşulu kullanılmıştır. Bölüm 3.3'te sunulan mitokondriyal stres deneyi basamaklarını kullanarak, hem WT hem de RIC ablasiyonlu suşların şu koşullar altındaki sağkalımını inceledik 5 µg/mL antimycin A kaynaklı mitokondriyal stres (Şekil 2H). Bölüm 4.1–4.3'te sunulan Veri analizi adımları kullanıldığında, RIC nöronları ablate edilmiş suşun sağkalım eğrisi, WT N2 kontrolüne kıyasla belirgin bir sağa kayma göstermiş ve bu durum mitokondriyal stres altında uzamış sağkalıma işaret etmiştir. Bu sonuç, RIC nöronlarının ablasyonunun mitokondriyal stres direncini artırdığını öne sürmektedir (Şekil 2H).
Mitokondriyal stres analizlerinden elde edilen tüm temsilci sonuçlar, farklı günlerde gerçekleştirilen üç bağımsız biyolojik tekrarla elde edilmiştir (Ek Şekil 4). Şekil açıklamalarında belirtilen hayvan sayısı (n değeri) katkıda bulunan Temsili sonuçlarda ve ek figürlerde gösterilen sağkalım eğrisindeki veriler, tek bir biyolojik tekrardaki dört teknik tekrardan elde edilen birleştirilmiş sayılardır.
RIC ablasyon suşunda oksidatif stres dozajının titrasyonu ve oksidatif stres direncinin karşılaştırılması
Bölüm 3.4'te sunulan oksidatif stres deneyi adımlarını kullanarak, artan oksidatif stres dozları olarak 2,5, 5, 10 veya 20 mM paraquat altında WT sağkalımını ölçtük (Şekil 2I). WT solucanların sağkalım eğrileri, doza bağlı olarak belirgin değişiklikler gösterdi. Fizyolojik olarak stres altında olmayan yaklaşık 20 günlük ortalama sağkalıma kıyasla (Şekil 2A), vahşi tip solucanların ortalama sağkalımı 2,5 mM'de 4,92 gün, 5 mM'de 3,81 gün, 10 mM'de 2,93 gün ve 20 mM paraquat'ta 2,81 gündür (Şekil 2I). İstatistiksel analizler ve P değerleri Ek Tablo 2'de ve şekil açıklamalarında ayrıntılı olarak sunulmuştur. Bu veriler, araştırmacıların bir oksidatif stres deneyi tasarlarken optimal paraquat dozunu ve zaman ölçeğini seçmeleri için güvenilir bilgiler sağlar. Araştırmacılar, solucan sağkalımını yaklaşık 10 gün boyunca değerlendirmek için 2,5 mM'yi seçebilir veya birkaç gün içinde sağkalım sonuçları elde etmek için daha yüksek paraquat konsantrasyonlarını kullanabilirler. Daha yüksek konsantrasyonların (10 mM ve 20 mM) mortaliteyi hızlandırdığını, orta ve düşük konsantrasyonların (2,5 mM ve 5 mM) ise sağkalımda daha kademeli bir düşüş yaratarak suşlar arasındaki ince farkların daha kolay ayırt edilmesine olanak tanıdığını unutmayın.
Daha sonra, RIC nöron ablasyonunun sağkalım üzerindeki etkisini WT hayvanlarla karşılaştırmak amacıyla oksidatif stres koşulu olarak, test edilen dozlar arasındaki orta düzey bir doz olan 5 mM paraquat kullandık. Bölüm 3.4'te sunulan oksidatif stres analizi adımlarını kullanarak, hem WT hem de RIC nöronları ablate edilmiş suşların 5 mM paraquat ile indüklenen oksidatif stres altındaki sağkalımını inceledik (Şekil 2J). Bölüm 4.1–4.3'te sunulan Veri analizi adımları kullanıldığında, sonuçlar 5 mM paraquat ile indüklenen oksidatif stres altında RIC nöronları ablate edilmiş suş ile yabani tip N2 kontrol grubu arasında anlamlı bir fark bulunmadığını göstermiştir (Şekil 2J).
Oksidatif stres analizlerinden elde edilen tüm temsili sonuçlar, farklı günlerde gerçekleştirilen üç bağımsız biyolojik tekrarla çalışılmıştır (Ek Şekil 5). Şekil açıklamalarında belirtilen hayvan sayısı (n değeri) katkıda bulunan temsili sonuçlarda ve ek figürlerde gösterilen sağkalım eğrisindeki veriler, tek bir biyolojik tekrardaki dört teknik tekrarın birleştirilmiş sayısıdır.
Sorun Giderme
Paraquat ile indüklenen oksidatif stres analizlerinde sık karşılaşılan bir sorun, solucanların agar plaklarından kaçmasıdır; bu durum hayvan kaybına ve analiz için mevcut olan solucan sayısının azalmasına yol açar. Bir palmitik asit bu kaçış davranışını kısmen bastırmak için deney plakalarına bir bariyer veya başka bir "çit" eklenebilir46,47ancak iyileşme mütevazıdır ve sorunu tamamen ortadan kaldırmamaktadır. ...'nın sağlığı ve yaşam süresinde anlamlı bir fark gözlenmemiştir C. elegans palmitik asit uygulaması sonrası48Palmitik asit bariyeri, itici bir etki gösterir. "çit" önlemek için NGM plaklarına C. elegans stres, açlık veya patojenler nedeniyle kaçmalarını önlemek için. Solucanların kaçışını minimize etmek için, uygulayın 30 µL 10 mg/mL palmitik asit içeren etanol içinde (50 mL %100 EtOH'ye 0,5 g palmitik asit ekleyin) 35 mm'lik analiz plağının kenarına ekleyin ve sürekli bir halka oluşturmak için plağı hafifçe dairesel hareketlerle sallayın. Etanol buharlaştıktan sonra, palmitik asit halka, solucanların kaçışını azaltmak için fiziksel ve kimyasal bir bariyer görevi görür. Palmitik asit halkasıyla temas halindeyken ölen solucanlar sansürlenir ve sağkalım analizinden hariç tutulur.
DİKKAT: Palmitik asit ve çözeltisi; eldiven, laboratuvar önlüğü ve göz koruyucu dahil olmak üzere uygun laboratuvar KKD'leri ile kullanılmalı ve cilt ile göz temasından kaçınmaya özen gösterilmelidir.
VERİ KULLANILABİLİRLİĞİ
Şekil 2 ve ek şekillerin temelini oluşturan, tüm biyolojik tekrarlara ait veriler ve istatistiksel sonuçlar dahil olmak üzere sağkalım verileri, Ek Şekil 1–5, Ek Tablo 1–2 ve Ek Dosya 1'de yer almaktadır.
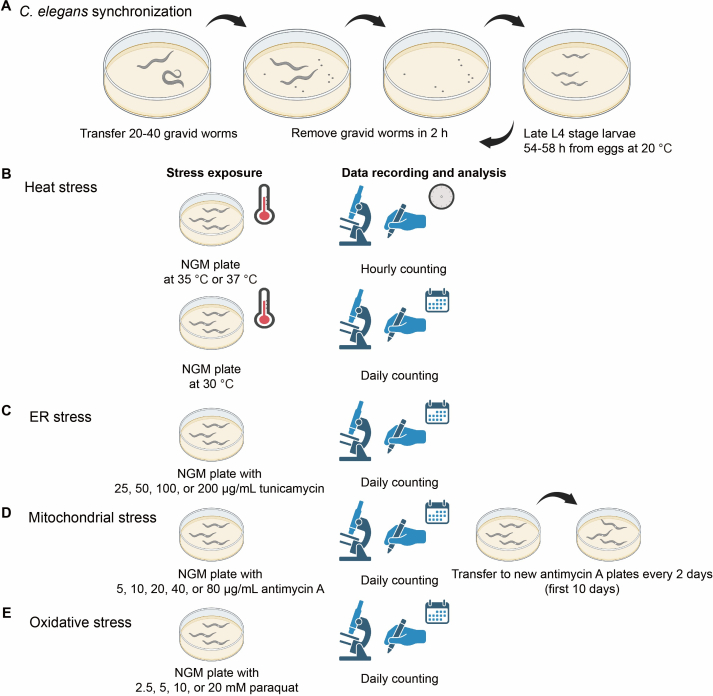
Şekil 1: Stres analizlerinin iş akışı. (A) Gravid solucanların 2 saatlik bir süre içinde bıraktığı yumurtalar toplanarak senkronize solucanlar elde edilir. Senkronize solucanlar tüm stres analizlerinde kullanılır ve 20 °C'de yumurtalardan itibaren 54-58 saatlik gelişimin ardından geç L4 evresinde stres plaklarına veya koşullarına aktarılır . (B) Isı stresi analizinde, senkronize solucanlar 35 °C veya 37 °C'lik bir inkübatördeki NGM plaklarına aktarılır ve ölü solucanlar saatlik olarak kaydedilir. 30 °C'lik inkübatördeki ısı stresi analizi için ölü solucanlar günlük olarak kaydedilir. (C) ER stresi analizinde, senkronize solucanlar 25, 50, 100 veya 200 µg/mL tunicamycin içeren NGM plaklarına aktarılır. Ölü solucanlar günlük olarak kaydedilir. (D) Mitokondriyal stres analizinde, senkronize solucanlar 5, 10, 20, 40 veya 80 µg/mL antimycin A içeren NGM plaklarına aktarılır ve sağkalım günlük kayıtlarla değerlendirilir. Yavrulardan kaynaklanan etkileşimi önlemek için, analizin ilk 10 günü boyunca solucanlar her iki günde bir taze antimycin A içeren plaklara aktarılır. (E) Oksidatif stres analizinde, senkronize solucanlar 2,5, 5, 10 veya 20 mM paraquat içeren NGM plaklarına aktarılır ve sağkalım günlük kayıtlarla değerlendirilir. Stres direnci, her analizden elde edilen Kaplan-Meier sağkalım eğrilerinin karşılaştırılmasıyla değerlendirilir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
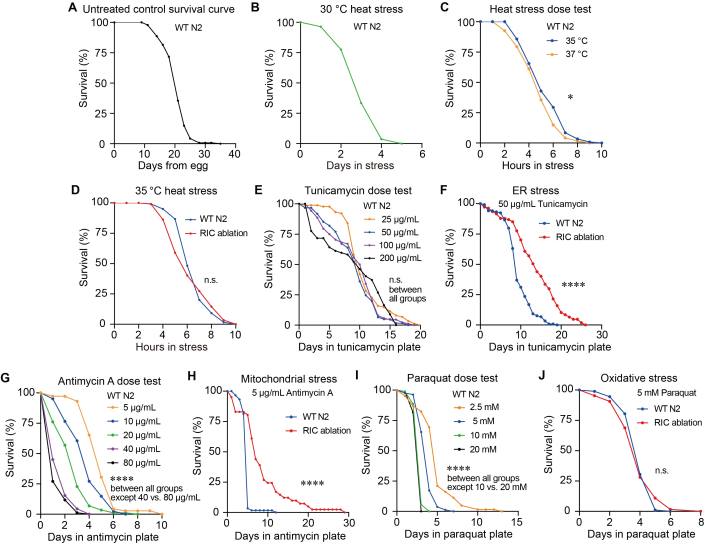
Şekil 2: Isı, ER, mitokondriyal ve oksidatif stres dozlarının titrasyonu ve RIC nöronları ablate edilmiş suşta stres direncinin karşılaştırılması. (A) Stres olmayan koşullar altında WT N2 suşunun temsili Kaplan-Meier sağkalım eğrisi (n = 141, ortalama sağkalım = 20.67 gün). (B) 30 °C ısı stresi altında WT N2 suşunun temsili Kaplan-Meier sağkalım eğrisi (n = 111, ortalama sağkalım = 3.11 gün). (C) 35 °C ve 37 °C ısı stresi altında WT N2 suşunun temsili Kaplan-Meier sağkalım eğrisi (n = 119, 121); log-rank testi, P = 0.0244, * P < 0.05 olduğunu belirtir. (D) 35 °C ısı stresi altında WT N2 ve RIC nöronları ablate edilmiş suşun temsili Kaplan-Meier sağkalım eğrisi (n = 117, 120); log-rank testi, P = 0.4972, n.s. anlamlı bir fark olmadığını belirtir. Kontrol olarak WT N2 kullanılmıştır. (E) Artan konsantrasyonlarda tunicamycin uygulaması altında WT N2 suşunun doz-yanıt sağkalım eğrileri (n = 88, 61, 88, 67); log-rank testi, P = 0.6472 (25 µg/mL v.s. 100 µg/mL), P = 0.1473 (25 µg/mL v.s. 50 µg/mL), P = 0.6581 (50 µg/mL v.s. 200 µg/mL), P = 1 (25 µg/mL v.s. 200 µg/mL; 50 µg/mL v.s. 100 µg/mL; 100 µg/mL v.s. 200 µg/mL), n.s. anlamlı bir fark olmadığını belirtir. (F) 50 µg/mL tunicamycin ile indüklenen ER stresi altında WT N2 ve RIC nöronları ablate edilmiş suşun temsili Kaplan-Meier sağkalım eğrisi (n = 119, 107); log-rank testi, **** P < 0.0001 olduğunu belirtir. (G) Artan konsantrasyonlarda antimycin A ile işlem görmüş WT N2 suşunun temsili Kaplan-Meier sağkalım eğrileri (n = 72, 81, 88, 91, 85); log-rank testi, P = 0.000038 (5 µg/mL v.s. 10 µg/mL), P = 0.00002 (10 µg/mL v.s. 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL v.s. 40 µg/mL), P < 0.0001 (5 µg/mL v.s. 20 µg/mL; 5 µg/mL v.s. 40 µg/mL; 5 µg/mL v.s. 80 µg/mL; 10 µg/mL v.s. 40 µg/mL; 10 µg/mL v.s. 80 µg/mL; veya 20 µg/mL v.s. 80 µg/mL), P = 0.189 (40 µg/mL v.s. 80 µg/mL), **** P < 0.0001 olduğunu belirtir. (H) 5 µg/mL antimycin A ile indüklenen mitokondriyal stres altında WT N2 ve RIC nöronları ablate edilmiş suşun temsili Kaplan-Meier sağkalım eğrisi (n = 59, 41); log-rank testi, P = 3.2 × 10⁻9, **** P < 0.0001 olduğunu belirtir. (I) Farklı paraquat dozları altında WT N2 suşunun temsili Kaplan-Meier sağkalım eğrileri (n = 62, 81, 88, 93); log-rank testi, P = 1.80 × 10⁻7 (2.5 mM v.s. 5 mM), P < 0.0001 (2.5 mM v.s. 10 mM; 2.5 mM v.s. 20 mM; 5 mM v.s. 10 mM; 5 mM v.s. 20 mM), P = 0.1445 (10 mM v.s. 20 mM), **** P < 0.0001 olduğunu belirtir. (J) 5 mM paraquat ile indüklenen oksidatif stres altında WT N2 ve RIC nöronları ablate edilmiş suşun temsili Kaplan-Meier sağkalım eğrileri (n = 92, 64); log-rank testi, P = 0.9817, n.s. anlamlı bir fark olmadığını belirtir. Tüm deneyler üç bağımsız biyolojik tekrarla gerçekleştirilmiştir. Tek bir biyolojik tekrardan elde edilen temsili sonuçlar bu şekilde gösterilmiştir. Her biyolojik tekrar, solucanak içeren dört teknik tekrar plakadan oluşmaktadır. Bu şekildeki sağkalım eğrisine katkıda bulunan hayvan sayısı (n), tek bir biyolojik tekrardaki dört teknik tekrarın birleştirilmiş sayısıdır. Bağımsız biyolojik tekrarlar, birleştirilmek yerine ayrı ayrı analiz edilmiş ve Ek Şekil 2–5'te bireysel veri setleri olarak sunulmuştur. Anlamlılık, sağkalım dağılımlarını karşılaştıran bir log-rank testi kullanılarak değerlendirilmiştir. Teknik tekrarlar arasındaki ayrıntılı istatistiksel P değerleri, ortalama sağkalım ve S. E. değerleri Ek Tablo 2'de yer almaktadır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil 1: RIC nöronu ablate edilmiş suşta tbh-1p::GFP floresansının yokluğu, buna karşın tbh-1p::GFP reporter kontrol suşunun RIC nöronlarında GFP ekspresyonunun gözlemlenmesi. (A) RIC nöronu ablate edilmiş suş tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP ve bir tbh-1p::GFP reporter kontrol suşu OH16150 tbh-1p::GFP; tdc-1p::mCherry'nin floresan görüntüleri. Geç L4 evresindeki solucanlar, GFP kanalı için 800 ms pozlama süresi ve bright-field kanalı için 176 ms pozlama süresi ile 488 nm eksitasyon kullanılarak görüntülenmiştir. Sarı ok uçları, kontrol tbh-1p::GFP reporter suşundaki RIC nöronlarının konumunu veya RIC nöronu ablate edilmiş suşta eksik olan RIC nöronlarının beklenen konumunu göstermektedir. RIC nöronu ablate edilmiş suşta RIC nöronu konumunda tbh-1p::GFP sinyali saptanmazken, tbh-1p::GFP reporter kontrol suşu OH16150'nin RIC nöronlarında tbh-1p::GFP sinyali gözlemlenmiştir. RIC nöronu ablate edilmiş suştaki vücut duvarı kası floresansı, bir ko-enjeksiyon markörü olan myo-3p::GFP'den kaynaklanmaktadır. (A) OH16150 için n = 14; RIC nöronu ablate edilmiş suş için n = 20. (B, C) Diğer iki biyolojik tekrardan elde edilen temsili sonuçlar. Geç L4 evresindeki solucanlar, GFP kanalı için 1007 ms (B) veya 1998 ms (C) pozlama süresi ve bright-field kanalı için 176 ms (B ve C) pozlama süresi ile 488 nm eksitasyon kullanılarak görüntülenmiştir. (B) OH16150 için n = 8; RIC nöronu ablate edilmiş suş için n = 17. (C) OH16150 için n = 14; RIC nöronu ablate edilmiş suş için n = 13. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 2: Stresle karşılaşılmayan koşullar veya ısı stresi altındaki sağkalım eğrilerinin biyolojik tekrarları. (A, B) Stresle karşılaşılmayan koşullar altında iki bağımsız biyolojik tekrardan elde edilen Kaplan-Meier sağkalım eğrileri. (A) n = 123, ortalama sağkalım = 20.52 gün; (B) n = 130, ortalama sağkalım = 22.74 gün. (C, D) 30 °C ısı stresi altındaki WT N2 suşunun Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan elde edilmiştir. (C) n = 130, ortalama sağkalım = 3.72 gün. (D) n = 98, ortalama sağkalım = 3.77 gün. (E, F) 35 °C veya 37 °C ısı stresi koşulları altındaki Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan elde edilmiştir. (E) n = 118, 121; log-rank testi, P = 0.0409, * P < 0.05'i belirtir, (F) n = 122, 120; log-rank testi, P = 0.0251, * P < 0.05'i belirtir. (G, H) 35 °C ısı stresi koşulları altında WT N2 ve RIC nöronları ablate edilmiş suşların Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan elde edilmiştir. (G) n = 79, 76; log-rank testi, P = 0.2217, n.s. anlamlı bir fark olmadığını belirtir. (H) n = 77, 81; log-rank testi, P = 0.1881, n.s. anlamlı bir fark olmadığını belirtir. Anlamlılık, sağkalım dağılımlarını karşılaştıran bir log-rank testi kullanılarak değerlendirilmiştir. Teknik tekrarlar arasındaki ayrıntılı istatistiksel P değerleri, ortalama sağkalım ve S. E. değerleri Ek Tablo 2'de yer almaktadır. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 3: ER stres koşulları altında sağkalım eğrilerinin biyolojik tekrarları. (A, B) Farklı konsantrasyonlarda tunicamycin tedavisi altındaki WT N2 suşunun Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan alınmıştır. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. Farklı gruplar arasındaki istatistiksel P değerleri (A ve B) Ek Tablo 2'de belirtilmiştir. (C, D) 50 µg/mL tunicamycin ile indüklenen ER stres koşulları altındaki WT N2 ve RIC nöronları ablate edilmiş suşun Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan alınmıştır. (C) n = 104, 55; log-rank testi, P = 0.012, * işareti P < 0.05 olduğunu gösterir, (D) n = 85, 109; log-rank testi, P = 0.0001, *** işareti P < 0.001 olduğunu gösterir. Anlamlılık, sağkalım dağılımlarını karşılaştıran bir log-rank testi kullanılarak değerlendirilmiştir. Teknik tekrarlar arasındaki ayrıntılı istatistiksel P değerleri, ortalama sağkalım ve S. E. değerleri Ek Tablo 2'de yer almaktadır. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil 4: Mitokondriyal stres koşulları altındaki sağkalım eğrilerinin biyolojik tekrarları. (A, B) Farklı antimisin A konsantrasyonlarındaki tedaviler altında WT N2 suşunun Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan alınmıştır. (A) n = 71, 80, 81, 88, 90. (B) n=71, 85, 83, 88, 87. Farklı gruplar arasındaki istatistiksel P değerleri (A ve B) Ek Tablo 2'de belirtilmiştir. (C, D) Antimisin A kaynaklı mitokondriyal stres altında WT N2 suşu ve RIC nöronları ablate edilmiş suşun Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan alınmıştır. (C) n = 105, 78; log-rank testi, P = 0.000004, **** P < 0.0001 olduğunu gösterir. (D) n = 89, 73; log-rank testi, **** P < 0.0001 olduğunu gösterir. Anlamlılık, sağkalım dağılımlarını karşılaştıran bir log-rank testi kullanılarak değerlendirilmiştir. Teknik tekrarlar arasındaki ayrıntılı istatistiksel P değerleri, ortalama sağkalım ve S. E. değerleri Ek Tablo 2'de yer almaktadır. Lütfen bu dosyayı indirmek için buraya tıklayınız.
Ek Şekil 5: Oksidatif stres koşulları altında sağkalım eğrilerinin biyolojik tekrarları. (A, B) Farklı paraquat konsantrasyonları ile uygulanan tedavi altında WT N2 suşunun Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan elde edilmiştir. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Farklı gruplar arasındaki istatistiksel P değerleri (A ve B) Ek Tablo 2'de belirtilmiştir. (C, D) 5 mM paraquat ile indüklenen oksidatif stres koşulları altında WT N2 ve RIC nöronları ablate edilmiş suşun Kaplan-Meier sağkalım eğrileri. Veriler iki bağımsız biyolojik tekrardan elde edilmiştir. (C) n = 87, 82; log-rank testi, P = 0.2629, n.s. anlamlı bir fark olmadığını belirtir. (D) n = 116, 118; log-rank testi, P = 0.1184, n.s. anlamlı bir fark olmadığını belirtir. Anlamlılık, sağkalım dağılımlarını karşılaştıran bir log-rank testi kullanılarak değerlendirilmiştir. Teknik tekrarlar arasındaki ayrıntılı istatistiksel P değerleri, ortalama sağkalım ve S. E. Ek Tablo 2'de yer almaktadır. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 1: Tüm sağkalım eğrilerine dahil edilen solucan sayılarının özeti. Tablo, başlangıçtaki solucan sayısını ve yırtılmış, torbalanmış ve sansürlenmiş solucan sayılarını özetlemektedir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 2: P değerleri, ortalama sağkalım ve S. E. dahil olmak üzere tüm sağkalım eğrilerinin ayrıntılı istatistiksel analizleri. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 1: Bu çalışmanın bulgularını destekleyen veriler.
RIC nöronlarının başarılı bir şekilde ablasyonunun doğrulanmasını ve ana şekillerde sunulan verilerin temelini oluşturan tüm biyolojik tekrarların sonuçlarını içerir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Burada standardize edilmiş adımları tanımladık ısı, ER, mitokondriyal ve oksidatif stres altında tekrarlanabilir stres analizleri için C. elegans (Şekil 1). Dört stresörün her birinin artan dozlarının, WT solucanların sağkalımı üzerindeki etkilerini inceledik (Şekil 2). Ayrıca, bir nöron ablasyon hattı kullanarak, dört stresörün tamamına karşı stres direncinde bir internöronun rolünün incelenmesine dair bir örnek sunduk (Şekil 2).
Burada sunulan stres deneyi protokolünün başarıyla uygulanabilmesi için süreçte birkaç temel hususun dikkate alınması gerekir. Agar tozu, besiyeri, ortam sıcaklığı ve nem gibi farklılıklardan kaynaklanan laboratuvarlar arası değişkenlik nedeniyle, her bir stres veya stres indükleyici bileşik konsantrasyonunun Protokol ve Sonuçlar bölümlerinde belirtilen titrasyon adımlarımız izlenerek titre edilmesi önerilir. Uygun bir stres koşulu, vahşi tip kontrol solucanlarında tekrarlanabilir, orta düzeyde bir sağkalım yanıtı oluşturmalı ve hem artmış hem de azalmış stres direncini tespit etmek için yeterli dinamik aralık sağlamalıdır. Neredeyse tam sağkalım veya neredeyse tam ölümle sonuçlanan koşullardan kaçınılmalıdır. Ardından, tüm biyolojik ve teknik tekrarlar için solucanların aynı gelişim evresinde senkronize edildiğinden emin olmak esastır. Solucan senkronizasyonu, bölüm 2.1–2.3'te belirtilen prosedür kullanılarak gerçekleştirilebilir. Geç L4 evresi senkronizasyonu önerilir. Stres deneylerini L4 evresinde başlatmak, C. elegans stres yanıtı araştırma alanında kabul görmüş bir uygulamadır ve çok sayıda çalışma oksidatif42, ısı 40,43 ve diğer stres direnç deneyleri35 için senkronize L4 hayvanlar kullanmıştır. Deneylere L4 evresinde başlamak, gelişimsel senkronizasyon sağlarken; yumurta üretiminin başlaması ve embriyo tutulumu dahil olmak üzere, her ikisi de stres direnci ölçümlerini etkileyebilen12,37,38,40 yetişkin yaşı ve üreme durumu farklarından kaynaklanan değişkenliği en aza indirir. Çalışmamızdaki tüm deney grupları senkronize edildiği ve aynı şekilde muamele gördüğü için bu yaklaşım, stres direncini karşılaştırmak için tutarlı ve uygun bir temel sağlar. Son olarak, solucanlar deney başlamadan önce aç bırakıldıysa veya strese maruz kaldıysa, stres deneyleri için senkronize döl üretmek amacıyla gravid solucanlar olarak kullanılmadan önce, döllerinin birkaç nesil boyunca beslenen ve strese maruz kalmayan koşullarda iyileştirilmesi gerekir.
Bağımsız biyolojik tekrarlar arasındaki deneyler arası değişkenlik; stres indükleyici bileşik içeren plakların 4 °C'de saklanma süresi ve OP50 bakteri ekim zamanlamesi dahil olmak üzere, plak hazırlama ve saklama aşamalarındaki farklılıklardan kaynaklanabilir. Farklı günlerde gerçekleştirilen deneyler arasında tekrarlanabilirliği artırmak için kritik plak hazırlama adımları; bölüm 1.1'deki NGM plakları, bölüm 3.2.1'deki tunikamisinle indüklenmiş ER stres plakları, bölüm 3.3.1'deki antimisin A ile indüklenmiş mitokondriyal stres plakları ve bölüm 3.4.1'deki paraquat ile indüklenmiş oksidatif stres plakları için belirtilen protokoller takip edilerek standartlaştırılmalıdır. Özellikle, agar plaklar döküldükten sonra oda sıcaklığında yaklaşık 24 h boyunca kurutulmalı ve agar tamamen katılaştıktan sonra OP50 ile ekilmelidir. OP50 ekilmiş NGM plakları, 4 °C'de saklanmadan önce oda sıcaklığında ek 24 h boyunca kurumaya bırakılmalıdır. Optimal kurutma süresi, havalandırmalı veya havalandırmasız plakların kullanımına ve sıcaklık ile nem gibi yerel çevresel koşullara bağlı olarak değişebilir. Bu nedenle, her laboratuvar bu adımı kendi koşullarına göre optimize etmeli ve tekrarlanabilirliği sağlamak için tüm bağımsız biyolojik tekrarlarda tutarlı bir kurutma süresi uygulamalıdır. Stres indükleyici bileşiklerin bozunmasını ve her ikisi de analiz tutarlılığını etkileyebilecek aşırı bakteri büyümesini en aza indirmek için stres analizi plakları, hazırlandıktan sonra bir hafta içinde kullanılmalıdır.
Bu protokol ayrıca, bir nöron ablasyon suşu kullanarak dört stresörün tamamına verilen stres yanıtında bir internöronun rolünün araştırılmasına dair bir örnek göstermiştir (Şekil 2). Bir nöronda spesifik olarak eksprese edilen bir genin promotörü, caspase-3 ekspresyonunu yönlendirmek ve hedef nöronu ablate etmek için kullanılabilir. Burada, RIC nöronlarında spesifik olarak gen ekspresyonunu yönlendiren tbh-1 promotörünü, RIC nöron ablasyonu için kullandık. tbh-1 promotörü, RIC hedefli genetik manipülasyon için yaygın olarak doğrulanmıştır ve hücreye özgü ekspresyon, kurtarma, kalsiyum görüntüleme ve nöronal susturma için rutin olarak kullanılmaktadır45,49,50. tbh-1 ile ilgili rapor edilen karakterizasyonla uyumlu olarak, tbh-1p::GFP ekspresyonunun RIC nöronları ile sınırlı olduğunu gözlemledik ve diğer dokularda floresans tespit etmedik (Ek Şekil 1). RIC nöronu ablate edilmiş suşta brood boyutunu veya germ hattı morfolojisini spesifik olarak incelemedik; ancak, RIC nöronu ablate edilmiş suşta belirgin fizyolojik defektler gözlemlemedik. tbh-1 raporerinin, üreme sisteminin somatik hücreleri olan somatik gonadal kılıf hücrelerinde ek ekspresyon sergilediği rapor edilmiştir51,52. RIC nöronlarının dışındaki düşük düzeyli ekspresyon olasılığını tamamen dışlayamasak da, tbh-1'in RIC dışı ekspresyonunun, RIC nöronu ablate edilmiş hayvanlarda gözlemlenen artmış stres direncinden sorumlu olmasını düşük bir ihtimal olarak değerlendiriyoruz. Bu yöntem iyi tanımlanmış olsa da49,50, hedef nöron dışındaki hücrelerdeki olası ekspresyon ile sınırlıdır. Bir nöronun rolünü onaylamak için başka metodolojilere ihtiyaç vardır; örneğin, stresörlere yanıt olarak nöron aktivitesinin izlenmesi veya stres deneylerinde bu nöron tarafından salınan nörotransmitterlerin rolünün değerlendirilmesi.
C. elegans sağkalım deneyleri, stres direncini ölçmek için güçlü araçlardır çünkü solucanların nispeten kısa yaşam süreleri (yaklaşık 20 ila 30 gün, Şekil 2) ve genellikle saatler ile günler arasında gerçekleşen, çoklu stresörlerin neden olduğu hızlı mortalite (Şekil 2). Ancak, sağkalım analizlerinin bir kısıtlaması, ikili bir canlı/ölü son nokta kullanmaları ve bu nedenle stres maruziyeti sırasında meydana gelen ilerleyici fizyolojik gerilemeyi yakalayamamalarıdır. Birden fazla zaman noktasında gerçekleştirilen çırpınma analizleri veya otomatik lokomosyon (hız) ölçümleri gibi tamamlayıcı analizler, stres sırasında nöromüsküler fonksiyonun kademeli kaybı hakkında ek bilgiler sağlayabilir. Bir diğer kısıtlama ise ölümün, nazik fiziksel uyarana yanıt verilmemesiyle belirlenmesidir; bu durum, lokomosyonu ciddi şekilde bozulmuş hayvanlarda canlılığın olduğundan düşük tahmin edilmesine yol açabilir. Ayrıca, manuel skorlama, gözlemciye bağlı değişkenlik ve potansiyel yanlılık oluşturur. Bu etkileri en aza indirmek için, bağımsız bir biyolojik tekrardaki tüm skorlamalar; genotipe ve deneysel koşullara karşı körleme yapılmış aynı araştırmacı tarafından gerçekleştirilmelidir. Her zaman noktasında aynı mikroskop büyütmesinin ve aydınlatma ayarlarının kullanılması dahil olmak üzere tutarlı skorlama koşulları, plakalar ve deneyler arasındaki değişkenliğin azaltılması açısından da önemlidir. Temsili sonuçlarda, RIC nöronu ablate edilmiş suşun, yabani tip solucanlara kıyasla ER ve mitokondriyal strese karşı artmış stres direnci gösterdiği, ancak ısı ve oksidatif strese karşı göstermediği bir örneği sunduk (Şekil 2). Dört stresörden ikisi altında görülen bir sağkalım farkı, tek başına nöron için yolaka özgü bir rol belirlemez; bu makaledeki biyolojik sonuç, mekanistik bir iddiadan ziyade yöntemin ve gözlemin bir kanıtı olarak sunulmuştur.
Burada açıklanan stres sağkalım analizlerinin ötesinde, C. elegans sağkalımını ölçmek için çeşitli otomatik platformlar geliştirilmiştir. Otomatik puanlama, işlem kapasitesini önemli ölçüde artırır, sürekli veya yüksek frekanslı izlemeyi mümkün kılar ve manuel puanlama ile ilişkili olan gözlemciye bağlı yanlılığı ve iş gücünü azaltır53,54,55. Bu sistemler, özellikle geniş ölçekli genetik veya kimyasal taramalar için avantajlıdır. Ancak, çoğu otomatik yöntem ölümü hareketin durmasından çıkarsar; bu da kullanılan görüntüleme algoritmasına ve tespit eşiğine bağlı olarak, stres altında durgun olan veya lokomosyonu ciddi şekilde bozulmuş olan solucanların yanlış sınıflandırılmasına neden olabilir. Otomatik tespit; sıcaklık, yoğuşma, fungal veya bakteriyel kontaminasyon ve kültür koşullarındaki varyasyonlar dahil olmak üzere, solucan tespitini engelleyebilecek ve sağkalım ölçümlerini etkileyebilecek çevresel faktörlerden de etkilenebilir. Buna karşılık manuel puanlama, deneycinin; bagging, internal hatching veya parçalanmış hayvanlar gibi özel puanlama veya sansürleme kriterleri gerektirebilecek anormal fenotipleri tanımlamasına olanak tanır. Manuel puanlama daha fazla iş gücü gerektirse ve gözlemci kaynaklı değişkenliğe açık olsa da, bu sınırlamalar körleme puanlama, standartlaştırılmış puanlama kriterleri ve aynı araştırmacı tarafından tutarlı puanlama yapılarak minimize edilebilir. Sonuç olarak, manuel ve otomatik sağkalım analizlerinin her birinin belirgin avantajları ve sınırlamaları vardır ve yöntem seçimi; deneysel hedefler, gereken işlem kapasitesi ve stres paradigmasının doğasına göre belirlenmelidir.
Hepsi birlikte, burada açıklanan yöntemler; ısı, mitokondriyal, ER ve oksidatif stres dahil olmak üzere çok sayıda çevresel stresöre karşı C. elegans yanıtlarının değerlendirilmesi için standardize edilmiş ve tekrarlanabilir bir çerçeve sunmaktadır. Çeşitli stresörlere karşı direncin değerlendirilmesi esastır çünkü genetik veya fizyolojik pertürbasyonlar, bir stres türüne karşı direnci artırırken bir diğerine karşı duyarlılığı artırabilir; böylece hem stresöre özgü hem de paylaşılan stres adaptasyon mekanizmaları ortaya çıkarılabilir. Bu analizler, farklı genotipler ve deneysel koşullar arasında stres direncinin kantitatif karşılaştırmalarına olanak tanır ve genlerin, nöronların ve metabolik yolların stres direncinin ve fizyolojik homeostazın korunmasındaki rollerini araştırmak için kolaylıkla uygulanabilir. Daha geniş kapsamda bu yöntemler, olumsuz çevresel koşullar altında organizma sağlığını ve sağkalımı destekleyen mekanizmaların belirlenmesi için sağlam bir platform sağlar.
Açıklamalar
Yazarların beyan edecekleri herhangi bir çıkar çatışması bulunmamaktadır.
Teşekkürler
Bu yayında bildirilen araştırmalar; Kansas Biyomedikal Araştırma Mükemmelliği Fikir Ağı (K-INBRE, P20 GM103418), Biyomedikal Araştırma Mükemmelliği Merkezi (COBRE, P20 GM113109) ve Kansas State Üniversitesi Johnson Kanser Araştırma Merkezi (Kanser Araştırmaları Genişletme Ödülü) tarafından S.H.'ye sağlanan fonlar ile desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Tunikamisin | Sigma-Aldrich | T7765 | ER stres indükleyicisi |
| Antimisin A | Sigma-Aldrich | A8674 | Mitokondriyal stres indükleyici |
| Metil viologen diklorür hidrat (paraquat) | Sigma-Aldrich | 856177 | Oksidatif stres indükleyici |
| Palmitik asit | MP Biomedicals, LLC | 100905 | Baskıla C. elegans kaçış davranış |
| Kolesterol | MP Biomedicals, LLC | 101382 | NGM için |
| Kalsiyum klorür | Thermo Fisher Scientific Inc. | C79-500 | NGM için |
| Susuz magnezyum sülfat | Mallinckrodt Pharmaceuticals plc | 6070 | NGM için |
| Agar | Apex Chemicals Co., Ltd | 20-273 | NGM için |
| Pepton | Apex Chemicals Co., Ltd | 20-260 | NGM için |
| Potasyum fosfat monobazik | Thermo Fisher Scientific Inc. | P285-3 | NGM için |
| Sodyum klorür | Thermo Fisher Scientific Inc. | S640-3 | NGM için |
| Dipotasyum fosfat | Allied Chemical, Genel Kimya Bölümü | Kod 2131 | NGM için |
| Petri kapları (35 mm) | Genesee Scientific, LLC | 32-103 | Stres analiz plakaları |
| Petri kapları (60 mm) | Genesee Scientific, LLC | 32-105 | Sürdürün C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC Soğutmalı İnkübatör Çalkalayıcı | Eppendorf / New Brunswick Scientific | C24KC | 37 °C inkübator |
| DigiTherm® 38 Litrelik Isıtmalı/Soğutmalı İnkübatör | Tritech Research Inc. | DT2-MP-47L | 35 °C inkübatör |
| Fisher Scientific Isotemp Düşük Sıcaklık İnkübatörü | Fisher Scientific | 146E | 30 °C inkübator |
| SHELab SRI20P Soğutmalı İnkübatör | Sheldon Manufacturing Inc. | SRI20P | 20 °C inkübatör |
| Leica M165 FC Araştırma Stereo Mikroskobu | Leica Microsystems | M165 FC | Görüntüleme için mikroskop |
| ACCU-SCOPE 3075-DIA Zoomlu Stereo Mikroskop | ACCU-SCOPE Inc. | 3075-DIA | Solucanların manipülasyonu ve skorlanması için mikroskop |
| Microsoft Excel 2019 | Microsoft Corporation | Ham verilerin grafiğe dökülmesi | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Veri görselleştirme | |
| OASIS 2 | POSTECH, PMID: 27528229 | İstatistiksel analiz | |
| BioRender | Science Suite Inc. | Şematik gösterim | |
| ImageJ | Ulusal Sağlık Enstitüleri (NIH) | Görüntü işleme | |
| Adobe Illustrator 2021 | Adobe Inc. | Şekil oluşturma düzen | |
| yabanıl tip | Caenorhabditis Genetics Center, CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | ev yapımı | RIC ablasyonu | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. RIC nöronları hem GFP hem de mCherry ile işaretlenmiştir | Caenorhabditis Genetik Merkezi, CGC | OH16150 |
Kaynaklar
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında