Bu protokol, deterjan aracılı bir zar proteini olan sitokrom bo3 ubiquinol oksidazın, PDMS-g-PEO'dan oluşan büyük unilamellar veziküllere dönüşmesini ve bunların füzyon-elektroformasyon yoluyla dev veziküllere dönüşmesini göstermektedir. Ortaya çıkan fonksiyonel polimer bazlı bölmeler, ileri biyokimyasal ve biyofiziksel çalışmalar için uygundur.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Membran Protein-Fonksiyonelleştirilmiş Polimer ve Polimer/Lipid Hibriti Büyük ve Devasa Unilamellar Veziküllerin Hazırlanması
Bu makalede
Özet
Özet
Amfifilik kopolimerlerden oluşan veziküller, tek başına veya fosfolipidlerle karıştırılmış olarak, geleneksel lipid veziküllerine kıyasla üstün mekanik ve kimyasal stabiliteler sunar. Bu da onları çekici bir şasi haline getirir; ilaç dağıtımı, tanısal biyosensör, yapay hücre inşası ve biyo-ilham mikro ve nanoreaktörler gibi belirli uygulamaları mümkün kılacak şekilde daha da geliştirilip genişletilebilir. Özellikle, membran proteininin dahil edilmesi yoluyla işlevselleştirme, bu uygulamaların çoğunda gereklidir. Burada, greft kopolimeri PDMS-g-PEO'dan deterjan aracılı yeniden yapılandırılma yoluyla membran protein-fonksiyonelleştirilmiş büyük unilameller veziküllerin (LUV) hazırlanması için bir protokol sunuyoruz. Ayrıca, bu büyük veziküllerin füzyon-elektroformasyon yaklaşımıyla dev unilamellar veziküllere (GUV) nasıl dönüştürülebileceğini açıklıyoruz. Protokol, membran proteinlerinin floresan etiketlenmesi, polimer ve hibrit LUV'ların hazırlanması, membran proteininin yeniden yapılandırılması, dinamik ışık saçılması (DLS) ile boyut dağılımı analizi, oksijen tüketimi ölçümleriyle protein aktivitesinin değerlendirilmesi, protein-fonksiyonel GUV'ların hazırlanması ve konfokal mikroskopi ile GUV'lerde protein yerleştirme ve proton pompalama aktivitesinin analizini kapsar. Temsil eden sonuçlar, polidispersite indeksi (PDI) 0.2'nin altında olan monodispers proteo-LUV'ların oluştuğunu ve çapı 5–35 μm arasında başarılı proteo-GUV üretimini göstermektedir. Protein aktivitesi, hem polimer LUV'larında (18,2 nmol/min/mL) hem de hibrit LUV'larda (26,9 nmol/min/mL) oksijen tüketimi ölçümleriyle doğrulanır. GUV'lara protein eklenmesi floresans yoğunluğuyla nicel olarak belirlenir; polimer GUV'lar için 20,6 ± 3,7 a.u., hibrit GUV'lar için ise 26,2 ± 5,0 a.u. verir. GUV'lerde kapsüllü pH-duyarlı boya ile izlenen proton pompalama aktivitesi, protein fonksiyonelliğiyle tutarlıdır ve içe doğru proton pompalama baskındır. Kopolimerin mekanik yumuşaklığı ve lipid benzeri çift katmanlı kalınlığı (~5,3 nm), verimli protein yerleştirilmesini ve işlevselliğin korunmasını destekler.
Giriş
Amfifilik blok kopolimerler, sulu çözelti içinde kendiliğinden bir şekilde birleşerek membranlara dönüşebilir; membranlar kendiliğinden eğriler ve kapanarak polimersomlar (polimer vezikülleri) olarak bilinen küresel membran kaplı bölmeler oluşturur. Lipid zarlarına kıyasla, polimer bazlı bölmeler daha fazla kimyasal yönlülük ve geliştirilmiş kimyasal1 ile mekanikstabilite2 sunar; bu da ilaç dağıtımı, nano- ve mikroreaktörler ile dayanıklı yapay hücrelerin inşası gibi uygulamalar için oldukça cazip hale getirir. Hem bizim grubumuz hem de diğerleri, membran proteinleri eklenerek yapay organeller ve hücreler oluşturmak için polimer zarlarınıişlevselleştirmiştir 1,3,4,5,6,7,8,9,10,11,12,13,14,15 . Poli(dimetilsiloksan) (PDMS) hidrofobik çekirdek içeren polimerler, yüksek zincir esnekliği ve membran hidrofobik kalınlığını proteinin transmembrandomainine daha iyi uydurma imkanı sayesinde membran proteini dahil etmek için özellikle uygundur 5. Laboratuvarımız ağırlıklı olarak greft kopolimeri poli(dimetilsiloksan)-greft-poli(etilen oksit) (PDMS-g-PEO) üzerine yoğunlaşmış olsa da, bu polimer, geleneksel lipid çift katmanlarından daha yumuşak ve yaklaşık 5,3 nm1 kalınlığa sahip yüksek dinamikmembranlar 4,16,17 oluştururken, diğer gruplar PMOXA-b-PDMS-b-PMOXA5 gibi PDMS tabanlı triblok kopolimerleri başarıyla kullanmıştır,6,7,8,9,10,11 ve PEtOz-b-PDMS-b-PEtOz12 membran proteini yeniden yapılandırılması için. Özellikle lipidlerle karıştırılmış hibrit sistemlerde PBD-b-PEO gibi nispeten sert diblok kopolimerler bile, başarılı proteininkorporasyonu için kullanılmıştır 13. Bu örnekler, polimer bazlı zarların yeniden yapılandırılma platformları olarak çok yönlülüğünü vurgular; bu da entegre zar proteinleri için geliştirilmiş kimyasal stabilite/14 ve uzun fonksiyonel ömür14 sağlayabilir. Polimer/lipid hibrit zarlar her zaman saf polimer sistemlerinin kimyasal stabilitesineuymasa da, polimerlerin mekanik dayanıklılığını lipidlerin biyolojik önemiyle birleştirerek cazip bir uzlaşma sunarlar. Bu, doğal biyolojik zarları daha yakından taklit eden ve sentetik malzemelerin temel avantajlarını koruyan bir zar ortamı ortaya çıkarır. Bu tür hibrit mimariler, nano ölçekli yeniden düzenleme1'den kaynaklanan proton geçirgenliğinin azalması ve membran15 içinde alan oluşumu gibi ek avantajlar da sağlayabilir.
Membran proteinlerinin nanoboyutlu veziküllere (LUV) yeniden yapılandırılması için organik çözücü aracılı yeniden yapılandırma (örneğin, ters faz buharlaştırma, lipid-protein filmlerinin yeniden hidratlanması), mekanik yaklaşımlar (örneğin, sonikasyon, pres, dondurma-eritme) ve deterjan aracılı yeniden yapılandırma (deterjan çıkarma, seyreltme veya doğrudan inkorporasyon yoluyla)18 ve stiren-maleik asit kopolimer nanodisklerden doğrudan transfer gibi daha yeni stratejiler yer alır19. Porinler, örneğin rehidrasyon sırasında polimer filmine protein eklenerek doğrudan yerleştirilerek polimer LUV'lara başarıyladahil edilmiştir 8. Bu yaklaşım genellikle daha büyük veya daha karmaşık membran proteinleri için düşük yerleştirme verimliliğine yol açar ve genellikle rastgele protein yönelimine yol açar. Sonuç olarak, deterjan aracılı yeniden yapılandırma, kontrollü deterjan eklenip ardından çıkarılmasını içerir ve en yaygın yöntem olarak kalır. Ayrıca, özellikle kontrollü yönelimin işlev için kritik olduğu asimetrik proteinler için, polimer bazlı LUV'lara daha büyük zar proteinlerinin dahil edilmesinde tercih edilen stratejidir. Bu yaklaşımda, vezikül membranları önce tercih edilen deterjanla doyurulur (doygun deterjan konsantrasyonu Rsatu olarak gösterilir), kısmen çözünür (veziküller ve misellerin birlikte var olması) veya tamamen çözünür, yani misellere parçalanır (deterjan konsantrasyonu Rsol olarak gösterilir). Bu ilk zar tedavisi ardından protein ekleme, kuluçka ve deterjançıkarımı yapılır. İkincisi, diyaliz, boyut dışlama kromatografisi veya hidrofobik polistiren boncuklara adsorpsiyon yoluyla (örneğin, Biyo-Boncuklar) sağlanabilir. Deterjan seçimi, konsantrasyonu ve çıkarma yöntemi, her membran tipi ve protein için optimize edilmiştir; böylece inişleme verimliliği en üst düzeye çıkarılır ve proteinyönelimi kontrol edilir 20.
LUV'lar toplu aktivite ölçümleri için oldukça uygun olsa da, tek vezikül çalışmaları ve optik mikroskopi tabanlı analizler zar proteinlerinin dev unilamellar veziküllere (GUV) yeniden oluşturulmasını gerektirir. GUV'lara protein dahil etmek için beş ana yaklaşım kullanılır: protein ve organik çözücü21 varlığında birlikte oluşum, deterjan22 varlığında birlikte oluşum, önceden oluşturulmuş GUV'lara deterjanseyreltme 23 ile yerleştirme, proteo-LUV'lar16,24 ile membran füzyonu ile yerleştirme ve füzyon-elektroformasyon25. Bu yaklaşımlar lipid GUV'lara başarıyla uygulanmış olsa da, polimer veya polimer/lipid hibrit GUV'lara transferi genellikle zordur. Özellikle, birlikte oluşum ve deterjan seyreltme yöntemleri, polimer membranlarında düşük yerleştirme verimliliğine yol açar veya bazı polimer bileşimleriyle uyumsuzolur 15. Ek fuzojenik ajanlara dayanan füzyon tabanlıstratejiler 4,16,24,26,27 de sorunlu olabilir; çünkü sentetik katyonik lipidler/polimerler veya fuzojenik peptitler zar protein stabilitesini zayıflatabilir, membran özelliklerini değiştirebilir veya hedef proteinin dahil etme verimliliğini azaltabilir. Füzyon elektroformasyonu, bu sınırlamaların çoğunu aşar ve membran proteinlerini polimer ile polimer/lipid hibrit GUV'lara entegre etmek için sağlam ve verimli bir yöntemolduğunu kanıtlamıştır 1,5,15. Bu yaklaşım, zar bütünlüğünü ve protein işlevselliğini korurken kontrollü protein dahil edilmesini sağlar ve özellikle proteinle işlevselleştirilmiş polimer GUV'ların üretimi için uygundur.
Proton pompalarının polimer bazlı veziküllere yeniden oluşturulması, dayanıklı yapay hücrelerin inşası için gereklidir; çünkü bu, canlı sistemlerin temel enerji para birimi olan transmembran proton gradyanlarının üretilmesini sağlar. Kontrollü minimal bir zar ortamında kemiosmotik enerjidönüşümü yeniden yaratarak 28, bu veziküller ATP sentezini, aktif taşınımı ve metabolik reaksiyonları yönlendirebilir ve otonom, yaşam benzeri işlevsellik için gerekli enerjik temeli oluşturur. Bu tür sistemlerde kullanılan temsilci proton pompası, E. coli'den alınan sitokrom bo3 oksidazdır; bu terminal solunum enzimi oksijen indirgemesini membran boyunca proton translokasyonuna bağlayır. Elektron transferi ve proton pompalaması sıkı bağlantılı olduğundan, sentetik veziküllerdeki aktiviteleri ya oksijen tüketimi 1,20 ile ya da proton gradyanıoluşumu 1 takip ederek nicel olarak izlenebilir.
Bu protokolde, saf polimer ve polimer/lipid hibrit zarları içeren PDMS-g-PEO tabanlı LUV'ların hazırlanması, bunların membran proteinleriyle işlevselleştirilmesi, GUV'lara ölçeklendirilmesi ve yeniden oluşturulmuş proton pompası sitokrom bo 3 oksidazın hem toplu oksijen tüketimi testleri hem de tek vezikül proton pompalama ölçümleriyle aktivite ölçümleri dahil olmak üzere ayrıntılı bir iş akışı sunuyoruz.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
NOT: Bu protokol sırasında oluşan tüm tehlikeli kimyasal atıklar, kurumsal ve yerel düzenlemelere uygun olarak bertaraf edilmelidir.
1. Bio-Beads SM-2 için Hazırlık
NOT: Bio-Beads SM-2, deterjan adsorpsiyonundan önce koruyucuları ve organik kirleticileri gidermek için metanol ile önceden yıkanır.
- Filtre kağıdını temiz bir cam beğen veya şişe üzerine yerleştirilmiş cam huni içine yerleştirin.
- Huniye en az 600 mg Bio-Beads SM-2 ekleyin (hem hibrit hem de polimer LUV'lar için 3 tekrar yapılması için yeterli).
NOT: Yeniden yapılandırılması için en az 90 mg Bio-Beads SM-2 gereklidir, bu da 4.4.1'de belirtildiği gibi. Daha fazla yeniden yapılandırma planlanırsa daha büyük bir miktar hazırlanabilir. - Boncukları saf metanolle üç kez yıkayın, her seferinde boncukları tamamen batıracak kadar hacim kullanın.
DIKKAT: Tüm metanolü işleme adımlarını kimyasal bir buhar davlumbazında yapın. - Boncukları hemen Milli-Q suyla üç kez yıkayarak kalan metanolü giderin.
NOT: Yıkama işlemi sırasında boncukların kurumasına izin vermeyin. Yıkama çözeltilerini çıkarırken, boncukların nemli kalmasını ve tamamen kurumasına izin verilmemesini sağlayın. - Yıkanmış boncukları uygun bir saklama kabına (örneğin, steril 50 mL polipropilen santrifüj tüpü veya sıkı kapalı cam şişe) aktarın, boncuklar tamamen suya batana kadar Milli-Q su ekleyin ve 4 °C'de 3 aya kadar saklayın.
2. Membran proteinlerinin floresans etiketlenmesi
- Protein seyreltme
- Sitokrom bo3 oksidazı, %0,05 n-dodesil β-D-maltozid (DDM) (w/v), pH 8,3 içeren 20 mM HEPES tamponu içinde 2,2 mg/mL olarak çözün. Bu pH, etkili etiketleme için yeterli protonlanmamış (reaktif) birincil aminler oranını sağlar.
NOT: ATTO N-hidroksisuçsinimidil (NHS) boyalarıyla optimal etiketleme için, tampon pH'ı 8.3 ile 8.5 arasında tutun. Diğer boyalar için, önerilen etiketleme koşulları dahil olmak üzere üreticinin protein konjugasyonu talimatlarını takip edin.
- Sitokrom bo3 oksidazı, %0,05 n-dodesil β-D-maltozid (DDM) (w/v), pH 8,3 içeren 20 mM HEPES tamponu içinde 2,2 mg/mL olarak çözün. Bu pH, etkili etiketleme için yeterli protonlanmamış (reaktif) birincil aminler oranını sağlar.
- Boya ekleme
- Protein çözeltisine 2 mg/mL ile susuz DMSO'da çözünmüş amin-reaktif ATTO 643 N-hidroksisuçinimil (NHS) esterin sekiz kat molar fazlasını ekleyin.
NOT: Diğer boyalar için, önerilen boya-protein azı dişi fazlalığı dahil olmak üzere protein konjugasyonu için üreticinin talimatlarına uyun. - Boyanın homojen dağılımını sağlamak için mikrosantrifüj tüpünü üç kez hafifçe karıştırın.
- Protein çözeltisine 2 mg/mL ile susuz DMSO'da çözünmüş amin-reaktif ATTO 643 N-hidroksisuçinimil (NHS) esterin sekiz kat molar fazlasını ekleyin.
- Kuluçka
- Reaksiyon karışımını oda sıcaklığında (20–25 °C) hafif çalkalama (250 rpm) altında termomikserde, karanlıkta fotoağartmayı önlemek için kuluçka edin.
- Bağlanmamış boyanın çıkarılması
- Superdex 200 10/300 GL kolonunu (CV: 23.562 mL) en az 2 kolon hacmi (yaklaşık 48 mL) membran protein ülüsyon tamponu (20 mM HEPES, pH 7.5, 200 mM KCl, %0.05 DDM (w/v)) ile 0.3 mL/dakika akış hızında ÄKTA arıtma sistemi kullanılarak dengelendirin.
NOT: Fazla floresan boyanın giderilmesi için, özellikle daha az hidrofilik boyalar için genellikle daha kısa jel filtrasyon kolonları (10–20 cm yatak uzunluğu) yeterlidir. Boya üreticisi, tuzdan arındırmanın Sephadex G-25 matrisi kullanılarak yapılmasını önerir. Bu çalışmada cihazın kullanılabilirliği nedeniyle Superdex 200 10/300 GL sütunu kullanıldı. - 1 mL kapiler döngü kullanarak etiketlenmiş proteinden 500 μL'ye kadar yükleyin ve aynı tamponla 0,3 mL/dakika hızla elüasyon yapın.
- Protein için 280 nm ve ATTO 643 boyası için 643 nm absorbans ölçümleriyle elüsyonu izleyin.
- 1.5 sütun hacminde 0.5 mL fraksiyonları toplayın. Hem protein hem de boya içeren fraksiyonları tespit edin. Yeterince yoğunlaşmışsa doğrudan kullanın veya Amicon santrifüj filtre üniteleriyle konsantre yapın. Amicon filtreleri kullanılarak santrasyon için, 30 kDa moleküler ağırlık kesimiyle santrifüj filtresi kullanın ve 14.000 × g sıcaklıkta 4 °C'de 30 dakika boyunca santrifüj yapın.
- Superdex 200 10/300 GL kolonunu (CV: 23.562 mL) en az 2 kolon hacmi (yaklaşık 48 mL) membran protein ülüsyon tamponu (20 mM HEPES, pH 7.5, 200 mM KCl, %0.05 DDM (w/v)) ile 0.3 mL/dakika akış hızında ÄKTA arıtma sistemi kullanılarak dengelendirin.
- Protein konsantrasyonu ve etiketleme derecesinin (DOL) belirlenmesi
- Saflaştırılmış eşgenin emilimcilik spektrumlarını ölç.
- Protein konsantrasyonunu ve enzim başına ortalama boya molekülü sayısını şu yöntemlerle hesaplayın:
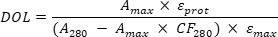
burada A max, boya emilimi maksimumunda (λabs; ATTO 643, λ = 643 nm), A280 280 nm'de (proteinlerin emilimi maksimumu) absorbanstır, εprot ise denatüre edilmiş sitokrom bo3 oksidazın azı dolar sönme katsayısıdır (184.720 M⁻1cm⁻1), εboya boyanın azı dişleri sönme katsayısıdır (150.000 M⁻1cm⁻1), CF280 ise ATTO 643 absorbansı için 280 nm (0.04) düzeltme faktörüdür.
3. Büyük unilamellar veziküllerin (LUV) hazırlanması
- İnce polimer veya polimer/lipid filminin hazırlanması
- Kloroform:metanolde (2:1, v/v) çözünmüş polimer, lipid ve floresan boya çözeltilerini, Tablo 1'de listelenen bileşimlere göre temiz cam şişeye dönüştürmek için solvent dirençli uçlu pozitif yer değiştirme pipetleri veya gaz geçirmez cam şırıngalar kullanın.
DIKKAT: Tüm solvent kullanımını koruyucu eldiven ve koruyucu gözlük takarak buhar kaputu altında yapın. - Çözeltiyi iyice karıştırın; şişe dik tutularak homojenliği sağlanır.
DIKKAT: Girdap hızını dikkatlice ayarlayın ki sıvı şişeden ellerinize sıçrama veya fışkırmasın. - Organik çözücüleri duman başlıkta hafif bir azot akışı altında yaklaşık 1 saat buharlaştırın, ta ki şişe duvarında eşit bir ince bir film oluşana kadar (Şekil 1).
NOT: Azot akışını sıvının sıçramadan nazikçe hareket etmesi için ayarlayın; Çok yüksek bir akış düzensiz film oluşumuna neden olabilir. 5–10 dakika sonra, vezikül karışımının tam kuruması ve şişe tabanı boyunca eşit şekilde yayılmasını sağlamak için akış biraz artırılabilir.
- Kloroform:metanolde (2:1, v/v) çözünmüş polimer, lipid ve floresan boya çözeltilerini, Tablo 1'de listelenen bileşimlere göre temiz cam şişeye dönüştürmek için solvent dirençli uçlu pozitif yer değiştirme pipetleri veya gaz geçirmez cam şırıngalar kullanın.
- Film rehidrasyonu
- Kurutulmuş filmi 1 mL rehidrasyon tamponu (1 mM Tris-HCl, pH 7,5, 200 mM sukroz) ile yeniden hidratlayın, böylece nihai amfifil konsantrasyonu 5 mg/mL elde edilir (polimersomlar için 1,67 mM, hibrit veziküller için 2,14 mM denk gelir). Polimerzomlar yeniden yapılandırılıyorsa, rehidrasyon tamponu %0,1 sodyum kolat ile takviye edilsin.
DIKKAT: Sodyum kolat hafif bir tahriş edicidir. Uzun süreli cilt temasından ve pudra solumaktan kaçının. Üreticinin güvenlik veri formuna (SDS) göre tutuyor. - Filmin tamamen ayrılıp askıya alınmasına kadar güçlü bir girdap devam eder ve çok lamellar veziküller (MLV) oluşturur.
- Kurutulmuş filmi 1 mL rehidrasyon tamponu (1 mM Tris-HCl, pH 7,5, 200 mM sukroz) ile yeniden hidratlayın, böylece nihai amfifil konsantrasyonu 5 mg/mL elde edilir (polimersomlar için 1,67 mM, hibrit veziküller için 2,14 mM denk gelir). Polimerzomlar yeniden yapılandırılıyorsa, rehidrasyon tamponu %0,1 sodyum kolat ile takviye edilsin.
- Donma–erime döngüleri (sadece hibrit veziküller)
- Hibrit MLV süspansiyonlarını beş donma–erime döngüsüne şu şekilde tabi tutuyor: örnekleri sıvı azotta 1 dakika dondurun, 35 °C su banyosunda tamamen eriyene kadar eritin ve 2500–3000 rpm'de 30 saniye boyunca bir tüp silkeleyici ile girdabda kalın. Bu işlemi toplamda beş döngü boyunca tekrarlayın.
NOT: Saf polimersomlar için bu adımı atlayın.
DIKKAT: Sıvı azot (−196 °C) şiddetli kriyojenik yanıklara neden olabilir. İyi havalandırılan bir alanda uygun PPE (kriyojenik eldivenler, güvenlik gözlüğü ve laboratuvar önlüğü) giyerek tutun. Cilt ve gözlerle temas kurmaktan kaçının.
- Hibrit MLV süspansiyonlarını beş donma–erime döngüsüne şu şekilde tabi tutuyor: örnekleri sıvı azotta 1 dakika dondurun, 35 °C su banyosunda tamamen eriyene kadar eritin ve 2500–3000 rpm'de 30 saniye boyunca bir tüp silkeleyici ile girdabda kalın. Bu işlemi toplamda beş döngü boyunca tekrarlayın.
- Ekstrüzyon
- Vezikül süspansiyonunu, 100 nm gözenek boyutunda polikarbonat membranla donatılmış bir mini ekstrudere aktarın.
- Süspansiyonu 21 kez ekstrüze ederek boyut homojen LUV'lar elde edilir.
NOT: Son ekstrüzyon adımının LUV süspansiyonunu enjektörde ilk yükleme şırıngasının tersi olarak bıraktığından emin olun. Bu, nihai numunenin daha büyük veziküller veya membrandan tam geçmemiş olabilecek kalıntı malzemelerle kontaminasyonunu en aza indirir.
- Depolama
- LUV süspansiyonunu 4 °C'de saklayıp bir hafta içinde kullanarak vezikül boyut dağılımını koruyabilir ve sukroz içeren tamponda toplanmayı veya mikrobiyal büyümeyi önler.
- Kullanmadan önce, LUV süspansiyonunu girdabla nazikçe homojenleştirin.
4. Zar proteininin LUV'lara yeniden yapılandırılması
- Veziküllerin deterjanla ön muamelesi
- 200 μL LUV 2 mL'lik bir mikrosantrifüj tüpüne aktarın (Şekil 1). Hibrit LUV kullanıyorsanız, %0,1 (w/v) deterjan konsantrasyonu elde etmek için %20 (w/v) sodyum kolat 1 μL ekleyin. Polimer LUV kullanılıyorsa, sodyum kolat zaten mevcut olduğu için ek deterjana gerek yoktur.
NOT: Deterjan stokunu deneylerde kullanılan aynı tamponda hazırlayın, veziküllerle uyumluluk sağlansın. - Mikrosantrifüj tüpünü hafifçe üç kez hafifçe vurarak nazikçe karıştırın. Yoğun çaltlaşma veya girdap oluşmaktan kaçının; bunlar köpük oluşturabilir ve hava kabarcıkları oluşturabilir.
- 200 μL LUV 2 mL'lik bir mikrosantrifüj tüpüne aktarın (Şekil 1). Hibrit LUV kullanıyorsanız, %0,1 (w/v) deterjan konsantrasyonu elde etmek için %20 (w/v) sodyum kolat 1 μL ekleyin. Polimer LUV kullanılıyorsa, sodyum kolat zaten mevcut olduğu için ek deterjana gerek yoktur.
- Deterjanla işlenmiş veziküllere proteinin tanıtımı
- Deterjanla dengesizleştirilmiş veziküllere sitokrom bo3 oksidaz (aktivite ölçümleri için) veya sitokrom bo3 oksidaz–ATTO 643 (floresans görüntüleme için) ekleyerek aşağıdaki nihai protein konsantrasyonlarını elde edinin: polimersomlar için LUV deneyleri için 0,556 μM ve GUV deneyleri için 1,112 μM; hibrit veziküller için LUV deneyleri için 0,714 μM, GUV deneyleri için ise 1,428 μM.
NOT: Bu konsantrasyonlar, LUV'lar için protein-polimer azı dişleri oranı 1:3.000, GUV'lar için ise 1:1.500 olarak karşılık gelir. - Proteini yavaşça ekleyin, nazikçe karıştırarak çözeltiye eşit şekilde dağıtmak ve yerel aşırı yoğunluğu önlemek amacıyla.
NOT: Protein stoklarındaki konsantrasyon farklılıkları nedeniyle eklenen protein hacmi fraksiyonlar arasında değişebilir.
- Deterjanla dengesizleştirilmiş veziküllere sitokrom bo3 oksidaz (aktivite ölçümleri için) veya sitokrom bo3 oksidaz–ATTO 643 (floresans görüntüleme için) ekleyerek aşağıdaki nihai protein konsantrasyonlarını elde edinin: polimersomlar için LUV deneyleri için 0,556 μM ve GUV deneyleri için 1,112 μM; hibrit veziküller için LUV deneyleri için 0,714 μM, GUV deneyleri için ise 1,428 μM.
- Protein–deterjan–polimer komplekslerinin montajı
- Karışımı 4 °C'de hafif bir çalkalama (400 rpm) ile termomikserde 30 dakika kuluçka edin; böylece deterjan çıkarılmadan önce karışım protein–deterjan-polimer yığımları oluşmasını sağlar.
- Deterjan çıkarımı
- Deterjanı sıralı olarak Bio-Beads SM-2 (Bio-Rad) ekleyerek çıkarın. Depolama çözeltisinden 30 mg Bio-Beads çıkarın, nemli kalmasını (ıslak ama fazla sıvı olmadan) emin olun. Boncukları numuneye ekleyin ve termomikserde 600 rpm'de hafif çalkalayarak 4 °C'de 30 dakika kuluçka yapın. Bu adımı iki kez daha tekrarlayın, toplamda 90 mg Bio-Beads ve toplam kuluçka süresi 1,5 saat olur.
NOT: Sadece tamamen nemlendirilmiş biyo-boncuklar kullanın. Kuru boncukları, Bio-Beads stok tüpünün duvarlarına yapışan boncukları veya yüzeyde yüzen boncukları aktarmayın. Eğer boncuklar, eklemeden sonra sıvı seviyesinin üzerinde yeniden yapılandırma reaksiyon tüpünün duvarına yapışırsa, tüpü kısa süreliğine santrifüjle (örneğin, tezgah üstü minisantrifüjde 3–5 saniye) ve inkubasyondan önce alt kısımda boncuklar toplanacaktır. - Bio-Beads'i 2.000 × g seviyesinde 2 dakika boyunca bir tezgah üstü mini santrifüj kullanarak pellet yapın. Boncuk pelletini rahatsız etmeden üst yüzeyi dikkatlice toplayın.
NOT: Santrifüjasyona alternatif olarak, boncukların yerçekimiyle yaklaşık 5 dakika çökmesine izin verin, ardından süpernatantı dikkatlice çıkarın.
- Deterjanı sıralı olarak Bio-Beads SM-2 (Bio-Rad) ekleyerek çıkarın. Depolama çözeltisinden 30 mg Bio-Beads çıkarın, nemli kalmasını (ıslak ama fazla sıvı olmadan) emin olun. Boncukları numuneye ekleyin ve termomikserde 600 rpm'de hafif çalkalayarak 4 °C'de 30 dakika kuluçka yapın. Bu adımı iki kez daha tekrarlayın, toplamda 90 mg Bio-Beads ve toplam kuluçka süresi 1,5 saat olur.
- Depolama
- Yeniden oluşturulmuş bo 3-LUV'ları 4 °C'de saklayıp aynı gün protein aktivite ölçümleri için kullanın.
5. Dinamik ışık saçılması (DLS) ile LUV'lerin boyutu ve dağılımı
- DLS ölçümleri için LUV'lerin yüklenmesi
- 45 μL seyreltilmemiş LUV veya proteo-LUV süspansiyonunu temiz bir kuvars küvetine aktarın. Cuvette'in toz, parmak izi veya diğer kalıntılardan arınmış olduğundan emin olun, böylece ışık saçma artefaktları en aza indirilebilir.
NOT: Hava kabarcıklarını oluşturmaktan kaçının, çünkü bunlar DLS ölçümlerini etkileyebilir. Kabarcıkları önlemek için, örneği küvet duvarı boyunca yavaşça pipetleyin ve son damlayı kuvvetle dışarı atmayın. Küçük baloncuklar oluşursa, ölçümden önce yükselip dağılmasına izin verin.
- 45 μL seyreltilmemiş LUV veya proteo-LUV süspansiyonunu temiz bir kuvars küvetine aktarın. Cuvette'in toz, parmak izi veya diğer kalıntılardan arınmış olduğundan emin olun, böylece ışık saçma artefaktları en aza indirilebilir.
- LUV boyutu ve dağılımın DLS ile belirlenmesi
- Hidrodinamik çapı ve polidispersite indeksini (PDI) 633 nm helyum-neon lazeri ile donatılmış bir DLS cihazı ve sabit 173° açıda geri saçılma algısı ile ölçün.
- Tekrarlanabilirliği sağlamak için her örnek başına en az üç bağımsız ölçüm yapın.
- Verileri genel amaçlı (normal dağılım) modeli kullanarak analiz ederek ortalama boyut ve PDI elde edin.
6. LUV'lerin oksijen tüketimi analizi
- Sıcaklık kurulumu
- Clark tipi oksijen elektrot sisteminin ölçüm odasını 22 °C'ye ayarlayın ve sistemin dengelenmesine izin verin.
- Buffer eklenmesi
- Ölçüm odasına 1 mM Tris-HCl (pH 7.5), 200 mM sukroz tamponu ekleyerek toplam hacmi 1.000 μL olur. Tampon hacmini örnek tipine göre ayarlayın: polimer bo 3-LUV'lar için 942,9 μL ve hibrit bo 3-LUV'lar için 953,7 μL.
NOT: Kalan hacim, nihai ölçüm hacmine ulaşmak için LUV'lar ve DTT/Q₁ karışımı tarafından işgal edilecektir.
- Ölçüm odasına 1 mM Tris-HCl (pH 7.5), 200 mM sukroz tamponu ekleyerek toplam hacmi 1.000 μL olur. Tampon hacmini örnek tipine göre ayarlayın: polimer bo 3-LUV'lar için 942,9 μL ve hibrit bo 3-LUV'lar için 953,7 μL.
- LUV'lerin eklenmesi
- Ölçüm odasına iki3-LUV ekleyin ve manyetik karıştırıcı ile 100 devir/dakika ve 22 °C'de nazik karıştırmaya başlayın. Bo 3-LUV'ların hacmini yaklaşık 27 nM teorik bo3 oksidaz konsantrasyonuna ulaşmak için ayarlayın: polimer bo 3-LUV'lar için 48,6 μL ve hibrit bo 3-LUV'lar için 37,8 μL.
NOT: Negatif kontrol için, bo 3-LUV'ları aynı lipid/polimer bileşimi ve konsantrasyona sahip eşdeğer hacimde proteinsiz LUV'larla değiştirin. Sonraki tüm adımlar aynı kalır.
- Ölçüm odasına iki3-LUV ekleyin ve manyetik karıştırıcı ile 100 devir/dakika ve 22 °C'de nazik karıştırmaya başlayın. Bo 3-LUV'ların hacmini yaklaşık 27 nM teorik bo3 oksidaz konsantrasyonuna ulaşmak için ayarlayın: polimer bo 3-LUV'lar için 48,6 μL ve hibrit bo 3-LUV'lar için 37,8 μL.
- Temel ölçüm
- Oksijen konsantrasyonunun stabil olmasına izin verin ve 22 °C'de sabit karıştırma altında 3 dakika boyunca ölçümün ki stabil bir baz çizgisi elde edin.
- İngulayıcı/kinon karışımının hazırlanması
- DTT/Q₁ karışımını kullanımdan hemen önce taze hazırlayın; 9.6 μL 1 M DTT'yi Milli-Q suda, 0.6 μL 80 mM ubiquinone-1 (Q₁) ile DMSO'da karıştırın, ardından homojenliği sağlamak için iyice girdabla karıştırın.
- Enzim aktivasyonu
- Bo 3 oksidazı, ölçüm odasına taze hazırlanmış DTT/Q₁ karışımından 8,5 μL eklenerek aktive edilir; böylece nihai konsantrasyonlar 8 mM DTT ve 40 μM Q₁ olur.
- Çoğaltmalar
- Tekrarlanabilirliği sağlamak için her örneği üç kez ölçün.
- Veri analizi
- Oksijen konsantrasyonunu zamanla karşılaştırın. Eğrinin doğrusal kısmının eğimini belirleyin; bu da oksijen tüketim oranına karşılık gelir.
- Raporlama
- Oksijen tüketim oranını üç ölçümün ortalaması olarak, standart sapma ile bildirin.
7. Protein-fonksiyonel GUV'ların hazırlanması
- ITO kaplı cam slaytların plazma temizliği
- İndiyüm kalay oksit (ITO) kaplı cam slaytları plazma temizleyiciye iletken (ITO kaplamalı) tarafı yukarı bakacak şekilde yerleştirin. Plazma, onları yüksek güç ayarında ("HI") (230 V, maksimum RF gücü 18 W) ve yaklaşık 0,5 mbar basınçta 1 dakika boyunca temizler.
NOT: Başarılı plazma ateşlenmesi, odanın içinde pembe/mor bir parıltının ortaya çıkmasıyla görsel olarak doğrulanabilir.
- İndiyüm kalay oksit (ITO) kaplı cam slaytları plazma temizleyiciye iletken (ITO kaplamalı) tarafı yukarı bakacak şekilde yerleştirin. Plazma, onları yüksek güç ayarında ("HI") (230 V, maksimum RF gücü 18 W) ve yaklaşık 0,5 mbar basınçta 1 dakika boyunca temizler.
- Proteo-LUV'ların kısmi susuzluğu
- 20 μL proteinsiz LUV'ları, yeniden oluşturulmuş bo3 oksidaz-ATTO 643 içeren 20 μL proteo-LUV ile karıştırın. Homojen karışımı sağlamak için nazikçe girdabla yapın.
- Ortaya çıkan 5 mg/mL LUV/proteo-LUV süspansiyonunun yedi 2 μL damlasını elektroformasyon için kullanılan her slaytın iletken (ITO kaplı) yüzeyine bırakın (Şekil 2A). Damlacıkları 160,6 mm2 yüzey boyunca eşit şekilde dağıtın, böylece film oluşmasını sağlamak için ayrı tutulur.
NOT: Diğer polimer sistemlerde LUV konsantrasyonu ve damla hacmi optimizasyon gerektirebilir (tipik aralık: 5–100 mg/mL LUV; 0.2–2 μL damlacıklar). - Damlacıkların oda sıcaklığında (∼22 °C) ve ∼20% nemde yaklaşık 40 dakika veya damlanın çevresinde beyaz bir halka oluşana kadar kısmen kurutmasına izin verin (Şekil 2B).
NOT: Susuzluk ortam nemine bağlıdır. Göreceli nem %40'ın üzerindeyse, dehidrasyon süresi gerektiğinde uzatılır (20 dakikaya kadar). Sabit bir zamana değil, damlanın çevresinde beyaz bir halkanın görünümüne göre uç noktayı belirleyin. Tutarlı çevresel koşullarda (sıcaklık ve nem), gerekli dehidrasyon süresi tekrarlanabilir. Aşırı kurumadan kaçının; bu tamamen düz, eşit beyaz damlacıklar olarak görülür, çünkü bu protein çökelmesine neden olabilir.
- Elektroformasyon odasının montajı
- Elektroformasyon odası, doldurma ve toplama sırasında tamponun eklenip çıkarılmasına olanak tanıyan 1,81 mm kalınlığında bir silikon ara parça ile birbirine yerleştirilerek (kaplı yanlar içe bakan) iki ITO kaplamalı slayt ile birleştirin.
- Odayı rehidrasyon tamponu ile doldurun (1 mM Tris-HCl, pH 7.5; 200 mM sakaroz).
pH hassasiyetli deneyler için, tampona 10 μM piranin (8-hidroksipiren-1,3,6-trisülfonik asit trisodyum tuzu, HPTS) eklenin.
- Elektroformasyon
- Aşağıdaki programı kullanarak sinüzoidal alternatif elektrik alanı uygulanır: 50 Hz, 50, 100, 200, 300, 500, 700 ve 900 mV, her biri 6 dakika süre; 50 Hz, 1.1 V'da 2 saat için.
NOT: Daha büyük proteo-GUV'ların oluşumunu teşvik etmek için bu adım 12 saat ve ayrılma aşaması için 2 V'da 30 dakika boyunca 4 Hz'e kadar uzatılabilir. Tamponda 10 μM piranin bulunduğunda, ilk iki voltaj artırma adımında frekansı 500 Hz'e çıkarın.
- Aşağıdaki programı kullanarak sinüzoidal alternatif elektrik alanı uygulanır: 50 Hz, 50, 100, 200, 300, 500, 700 ve 900 mV, her biri 6 dakika süre; 50 Hz, 1.1 V'da 2 saat için.
- GUV Koleksiyonu
- Hazneyi cımbızla dikkatlice açın ve mekanik stresi en aza indirmek için FineTip Ultra-Micro Pastette pipetleri (veya eşdeğer düşük kesme transfer pipetleri) ile GUV'ları toplayın.
NOT: 200 μL'nin altındaki standart düşük hacimli pipet uçlarını kullanmaktan kaçının, çünkü bunlar daha büyük GUV'ları patlatabilir. Alternatif olarak, standart uçlar açılışı genişletmek ve toplama sırasında kesmeyi azaltmak için kesilebilir.
- Hazneyi cımbızla dikkatlice açın ve mekanik stresi en aza indirmek için FineTip Ultra-Micro Pastette pipetleri (veya eşdeğer düşük kesme transfer pipetleri) ile GUV'ları toplayın.
- Depolama
- Proteo-GUV'ları 4 °C'de depolayın ve protein aktivitesini korumak için 48 saat içinde kullanın.
NOT: Aktivite kaybı oranı, yeniden oluşturulmuş membran proteininin türü ve stabilitesi ile zarın bileşimine bağlıdır.
- Proteo-GUV'ları 4 °C'de depolayın ve protein aktivitesini korumak için 48 saat içinde kullanın.
8. Protein-fonksiyonel GUV'ların mikroskopisi
- Mikroskop kurulumu
- Konfokal mikroskobu aç. Leica sistemi kullanıyorsanız, LAS X yazılımını başlatın. Diğer mikroskop markaları için üreticinin önerdiği satın alma yazılımını kullanın.
- 63× yağ batdırma hedefi (NA 1.40) seçin; gerekirse GUV boyutuna bağlı olarak daha yüksek veya daha düşük büyütme ayarlayabilirsiniz.
- Floroforlara karşılık gelen iki görüntüleme kanalını açın: Rhodamine Red (membran) ve ATTO 643 (yeniden oluşturulmuş protein).
NOT: Kısmen örtüşen spektrumlara sahip floroforlar için, spektral çapraz konuşmayı en aza indirmek için uygun lazer çizgileri ve dar algılama pencereleri seçin. Sinyalin sızmasını önlemek ve doğru floresans ölçüsünü sağlamak için her kanalı sıralı olarak alın.
- GUV'lerin sedimentasyonu
- Temiz No. 1.5 cam kaplama (0.17 mm kalınlığında) üzerine pres-to-con silikon izolatör yerleştirin.
NOT: Dik (ters olmayan) mikroskoplar için daha kalın cam slaytlar kullanılabilir. - 60 μL tampon (1 mM Tris-HCl, pH 7.5; 200 mM glikoz) aralığın ortasına pipet yapın.
- Tamponun üstüne nazikçe 20 μL GUV süspansiyonu ekleyin.
- Buharlaşmadan kaçınmak için hemen ikinci bir cam kapak sürgüsünü kullanarak kamerayı kapatın.
- GUV'ların görüntülemeden önce ~5 dakika boyunca tortu birikmesine izin verin.
- Temiz No. 1.5 cam kaplama (0.17 mm kalınlığında) üzerine pres-to-con silikon izolatör yerleştirin.
- Görüntü edinimi
- GUV'ların kesitlerini yakalamak için odanın altına odaklanın.
- Temsilci bir popülasyon (~100 GUV) elde etmek için sistematik olarak üst soldan alt-sağ köşeye ("yılan" deseni) tarama yaparak odadaki farklı GUV'ların görüntülerini elde edinin. Tarama sırasında karşılaşılan tüm vezikülleri, boyut veya floresans yoğunluğu ne olursa olsun, ön seçim olmadan görüntüleyin; böylece seçim yanlılığını önler ve tekrarlanabilirlik sağlansın.
NOT: Aynı GUV'nin tekrar görüntülenmesinden kaçının, böylece foto ağartmayı önleyin.
- Görüntü analizi
- Yeniden oluşturulmuş ATTO 643 etiketli proteinin floresans yoğunluğunu, bireysel GUV'ların membranı boyunca bir poliline çizerek niceliklerini ölçebilirsiniz. LAS X yazılımını kullanırken, Nicify → Line Profile seçin, ardından poliline aracını seçip her GUV'nin membranını takip edin. Ortalama floresans yoğunluğunu elde etmek için İstatistikleri açın ve ortalama değeri kaydedin. Sadece temiz, unilamellar GUV'ları analiz edin; çoklu vezikülleri ve agregat vezikülleri analizden hariç tutun.
NOT: Ölçümler farklı günlerde alınırsa, floresan yoğunlukları lazer gücüne normalize edilmeli ve aynı görüntüleme ayarlarında (dalga boyu ve nominal güç) ölçülmelidir. Günlük lazer çıkışındaki değişimleri hesaba katmak için aşağıdaki normalleştirme uygulanır: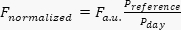 , burada Fa.u. rastgele birimlerle ölçülen floresans yoğunluğudur, Preferansı referans gününde ölçülen lazer gücü ve alınma gününde ölçülen lazer gücüdür. Bu düzeltme, lazer gücü ile floresans yoğunluğu arasında doymayan aydınlatma koşullarında doğrusal bir ilişki varsayar. Mevcut çalışmada, tüm görüntüler aynı günde alındığı için normalizasyon gerekmemiştir.
- Flüoresans yoğunluğunu ortalama 100 GUV olarak ve karşılık gelen standart sapma olarak bildirin.
- Yeniden oluşturulmuş ATTO 643 etiketli proteinin floresans yoğunluğunu, bireysel GUV'ların membranı boyunca bir poliline çizerek niceliklerini ölçebilirsiniz. LAS X yazılımını kullanırken, Nicify → Line Profile seçin, ardından poliline aracını seçip her GUV'nin membranını takip edin. Ortalama floresans yoğunluğunu elde etmek için İstatistikleri açın ve ortalama değeri kaydedin. Sadece temiz, unilamellar GUV'ları analiz edin; çoklu vezikülleri ve agregat vezikülleri analizden hariç tutun.
9. Proteo-GUV'larda proton pompalama analizi
- Mikroskop kurulumu
- Konfokal mikroskobu açın ve uygun satın alma yazılımını (örneğin, Leica sistemleri için LAS X) başlatın.
- 63× yağ daldırma hedefi (NA 1.40) seçin. GUV boyutuna bağlı olarak gerekirse daha yüksek veya daha düşük büyütme ayarlayın.
- Floroforlara karşılık gelen üç görüntüleme kanalını yapılandırın. Rhodamine Red (membran belirteci) için 561 nm uyarılma ve 570–620 nm emisyon aralığı kullanın. Piranin (kapsüllenmiş pH-hassas boya) için, 448 nm ve 405 nm uyarımlar kullanın ve 499–551 nm aralığında emisyon toplayın.
NOT: Eğer 458 nm lazer varsa, 448 nm yerine onu kullanarak deprotonlanmış (temel) piranin formunu uyarın. - Piksel doygunluğunu önlemek ve fotoağartmayı en aza indirmek için lazer gücünü ve dedektör kazancını ayarlayın. Deney boyunca satın alma ayarlarını sabit tutun.
- GUV'lerin sedimentasyonu
- 8 delikli bir slaytın bir kuyusuna 280 μL tampon (1 mM Tris-HCl, pH 7.5; 200 mM glikoz) ekleyin (toplam kuyu hacmi: ~874 μL).
NOT: 200 μL'nin altındakı hacimler buharlaşmayı ve pH kaymasını artırdığı için 200 μL'den az kullanmayın. Dökülmeleri önlemek ve pipetlemenin rahat olmasını sağlamak için 400 μL'yi aşmayın. Farklı bir kamera formatı kullanıyorsanız, ses seviyesini buna göre ayarlayın. Ters mikroskoplar için, #1.5H kapak kalınlığına uygun odalı slaytlar kullanın. - Hava kabarcıkları oluşmadan tamponun üstüne nazikçe 20 μL bo3-GUV süspansiyonu ekleyin.
NOT: Negatif kontrol için, bo 3-GUV süspansiyonunu, aynı lipid/polimer bileşimine sahip, aynı koşullarda hazırlanıp tortulmuş proteinsiz GUV'lardan eşdeğer hacimde (20 μL) ile değiştirin. Bu kontrol, DTT ve Q1'in piranin floresans oranı üzerindeki ve bo3 oksidaz aktivitesinden bağımsız spesifik olmayan etkilerini açıklar. - GUV'ların yaklaşık 5 dakika boyunca tortulmasına izin verin, görüntülemeden önce.
- 8 delikli bir slaytın bir kuyusuna 280 μL tampon (1 mM Tris-HCl, pH 7.5; 200 mM glikoz) ekleyin (toplam kuyu hacmi: ~874 μL).
- Temel satın alma
- GUV'ların çöktüğü odanın alt düzlemine odaklanın.
- Görüş alanında 3–6 GUV elde etmek için yakınlaştırmayı ayarlayın.
- Aktivasyondan önce tüm kanallarda 5 dakika boyunca başlangıç floresansını kaydedin.
- Proton pompalamanın aktivasyonu
- Kullanımdan hemen önce 4.8 μL 1 M DTT ile 0.3 μL 80 mM Q₁ DMSO'da karıştırarak taze DTT–Q₁ karışımı hazırlayın, ardından vorteksle iyice karıştırın.
- Pipet ucunu tampona sokmadan çözeltinin yüzeyine nazikçe 2,6 μL DTT–Q₁ karışımı ekleyerek sitokrom bo3 oksidazı aktive edin; böylece yaklaşık 8 mM DTT ve 40 μM Q₁ nihai konsantrasyonları oluşur.
- Sürekli alım altında intraveziküler piranin floresansını 30 dakika boyunca izleyin.
- İntraveziküler piranin floresansının analizi
- Her GUV için, vezikül lümeninde bir ilgi alanı (ROI) tanımlayın. LAS X yazılımında, Quantify → Stack Profile'a gidin, Draw Ellipse'i seçin ve her GUV içinde dairesel bir yatırım getirisi oluşturun.
- Her iki uyarılma dalga boyunda (448 nm ve 405 nm) ortalama floresans yoğunluğunu 499–551 nm arasında belirlemek için, yazılımda İstatistik'i açın ve ortalama değeri kaydedin.
- Floresans oranını R = I448/I405 olarak hesaplayın.
- Oranı zaman içinde çizerek intraveziküler pH değişiminin kinetik izlerini elde edin.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
E. coli sitokrom bo3 oksidaz, plazmid pETcyo'dan E. coli suşu C43 (DE3) ΔcyoABCDE'de eksprese edildi ve daha önce tarif edildiğigibi saflaştırıldı 29. Arıtılmış bo3 oksidaz, doğrudan yeniden yapılandırılma ve aktivite ölçümleri için kullanıldı ya da ATTO 643 (bu çalışma) veya diğer ATTOboyaları 1,15 gibi floresan boyalarla etiketlendi. ATTO 643 gibi...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Polimersomlar ve polimer/lipid hibrit veziküller, geleneksel lipid veziküllerine kıyasla gelişmiş kimyasal ve mekanik kararlılık sergiler; bu da ilaç dağıtımı ve biyosensörlemeden nano- ve mikroreaktörler ile yapay hücrelere kadar çeşitli uygulamalar için oldukça cazip hale gelir. Ancak, ayırt edici membran mimarisi ve biyofiziksel özellikleri, lipid vezikülleri için optimize edilmiş protokollerin polimer bazlı sistemlere doğrudan aktarılmasınısıklıkla engeller 15...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarlar, rekabet eden finansal çıkarlar belirtmemektedir.
Teşekkürler
Bu araştırma, Dieter Schwarz Vakfı ve Max Planck Derneği iş birliği içinde desteklenen Max Planck Okulu Matter to Life kapsamında yürütülmüştür. Sitokrom bo3 oksidazın izolasyonu ve saflaştırılması için Claudia Bednarz'a, vezikül hazırlama ve mikroskopi konusundaki yardımları için ise Anne Christin Weinrich'e minnettarız.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| ÄKTA pure™ chromatography system | Cytiva | 29018224 | |
| 18:1 Liss Rhod PE | Avanti Research | 810150 | |
| 8 well chambered coverglass | Cellvis | C8-1.5H-N | |
| Amicon Ultra 0.5 mL Centrifugal Filters | Sigma Aldrich | UFC5030 | |
| ATTO 643 NHS ester | ATTO-TEC | AD 643-31 | |
| Bio-Beads SM-2 | Bio-Rad | 1523920 | |
| Cholic acid-Na-salt (sodium cholate) | Serva | 361-09-1 | |
| Coenzyme Q1 | TargetMol | TGM-T19594 | |
| Confocal microscope STELLARIS 5 | Leica Microsystems | 603810 | |
| DTT (Dithiothreitol) | Merck | 10197777001 | |
| Fine Tip Ultra Micro Pastette | Pastette | LW4243 | |
| HPTS (pyranine, 8-Hydroxypyrene-1,3,6-Trisulfonic Acid, Trisodium Salt) | Sigma Aldrich | 6358-69-6 | |
| ITO-coated glass slides (25×75×1.1 mm, ≤20 Ohm/sq.) | pgo | CEC020S | |
| LAS X software | Leica | https://www.leica-microsystems.com/products/microscope-software/p/leica-las-x-ls/ | |
| Mini centrifuge MCF-2360 | LMS | 24572 | |
| Mini-extruder | Avanti Research | 610000 | |
| Oxytherm+P system | Hansatech Instruments | / | |
| Plasma cleaner (benchtop) | Harrick Plasma | PDC-32G-2 | |
| Polycarbonate membranes 0.1 μm | Avanti Research | 610005 | |
| Press-to-seal silicone isolator (round, 20 mm diameter, 1 mm depth) | Grace Bio-Labs | 41161502 | |
| Silicone spacers (round, 24.2 mm outer diameter, 14.3 mm inner diameter, 1.8 mm depth) | laboratory-made, cut from silicone sheet | ||
| Soy PC (95%) | Avanti Research | 441601 | |
| Specord 50 PLUS spectrophotometer | Analytik Jena | 823-0200P-3 | |
| Superdex 200 10/300 GL column (column L × I.D. 30 cm × 10 mm) | Cytiva | 28-9909-44 | |
| Test tube shaker (2800 rpm) | IKA Lab Dancer | 3365000 | |
| Thermomixer comfort 5355 | Eppendorf | 5355000.011 | |
| Xiameter OFX-5329 (PDMS-g-PEO; MW 3000) | Dow Corning | 000000000004109892 | |
| Zetasizer Nano ZS | Malvern Panalytical | ZEN3600 |
Kaynaklar
- Marušič N, et al. Constructing artificial respiratory chain in polymer compartments: Insights into the interplay between bo3 oxidase and the membrane. Proc Natl Acad Sci U S A. 2020;117(26):15006-17.
- Bermudez H, Brannan AK, Hammer DA, Bates FS, Discher DE. Molecular Weight Dependence of Polymersome Membrane Structure, Elasticity, and Stability. Macromolecules. 2002;35(21):8203-8.
- Otrin L, et al. Toward Artificial Mitochondrion: Mimicking Oxidative Phosphorylation in Polymer and Hybrid Membranes. Nano Lett. 2017;17(11):6816-21.
- Otrin L, et al. En route to dynamic life processes by SNARE-mediated fusion of polymer and hybrid membranes. Nat Commun. 2021;12(1):4972.
- Itel F, Najer A, Palivan CG, Meier W. Dynamics of Membrane Proteins within Synthetic Polymer Membranes with Large Hydrophobic Mismatch. Nano Lett. 2015;15(6):3871-8.
- Goers R, et al. Optimized reconstitution of membrane proteins into synthetic membranes. Commun Chem. 2018;1(1):35.
- Nardin C, Thoeni S, Widmer J, Winterhalter M, Meier W. Nanoreactors based on (polymerized) ABA-triblock copolymer vesicles. Chem Commun. 2000;(15):1433-4.
- Einfalt T, et al. Stimuli-Triggered Activity of Nanoreactors by Biomimetic Engineering Polymer Membranes. Nano Lett. 2015;15(11):7596-603.
- Ranquin A, Versées W, Meier W, Steyaert J, Van Gelder P. Therapeutic Nanoreactors: Combining Chemistry and Biology in a Novel Triblock Copolymer Drug Delivery System. Nano Lett. 2005;5(11):2220-4.
- Ihle S, et al. Nanocompartments with a pH release system based on an engineered OmpF channel protein. Soft Matter. 2011;7(2):532-9.
- Kumar M, et al. Highly permeable polymeric membranes based on the incorporation of the functional water channel protein Aquaporin Z. Proc Natl Acad Sci U S A. 2007;104(52):20719-20724.
- Choi HJ, Montemagno CD. Artificial Organelle: ATP Synthesis from Cellular Mimetic Polymersomes. Nano Lett. 2005;5(12):2538-42.
- Khan S,et al. Durable proteo-hybrid vesicles for the extended functional lifetime of membrane proteins in bionanotechnology. Chem Commun. 2016;52(73):11020-3.
- Kleineberg C, et al. Light-Driven ATP Regeneration in Diblock/Grafted Hybrid Vesicles. Chembiochem. 2020;21(15):2149-60.
- Otrin N, et al. Protein-Rich Rafts in Hybrid Polymer/Lipid Giant Unilamellar Vesicles. Biomacromolecules. 2024;25(2):778-91.
- Marušič N, et al. Increased efficiency of charge-mediated fusion in polymer/lipid hybrid membranes. Proc Natl Acad Sci U S A. 2022;119(20):e2122468119.
- Marušič N,et al. Fusion-Induced Growth of Biomimetic Polymersomes: Behavior of Poly(dimethylsiloxane)-Poly(ethylene oxide) Vesicles in Saline Solutions Under High Agitation. Macromol Rapid Commun. 2022;43(5):2100712.
- Rigaud JL, Pitard B, Levy D. Reconstitution of membrane proteins into liposomes: application to energy-transducing membrane proteins. Biochim Biophys Acta. 1995;1231(3):223-46.
- Catania R,et al. Detergent-Free Functionalization of Hybrid Vesicles with Membrane Proteins Using SMALPs. Macromolecules. 2022;55(9):3415-22.
- Otrin L. Bottom-up construction of the artificial mitochondrion [dissertation]. Magdeburg: Otto-von-Guericke-University; 2021.
- Manneville JB, Bassereau P, Ramaswamy S, Prost J. Active membrane fluctuations studied by micropipet aspiration. Phys Rev E Stat Nonlin Soft Matter Phys. 2001;64(2 Pt 1):021908.
- Dezi M, Di Cicco A, Bassereau P, Lévy D. Detergent-mediated incorporation of transmembrane proteins in giant unilamellar vesicles with controlled physiological contents. Proc Natl Acad Sci U S A. 2013;110(18):7276-81.
- Sjoholm J, et al. The lateral distance between a proton pump and ATP synthase determines the ATP-synthesis rate. Sci Rep. 2017;7(1):2926.
- Biner O, Schick T, Muller Y, von Ballmoos C. Delivery of membrane proteins into small and giant unilamellar vesicles by charge-mediated fusion. FEBS Lett. 2016;590(14):2051-62.
- Girard P,et al. A new method for the reconstitution of membrane proteins into giant unilamellar vesicles. Biophys J. 2004;87(1):419-29.
- Nordlund G, Brzezinski P, von Ballmoos C. SNARE-fusion mediated insertion of membrane proteins into native and artificial membranes. Nat Commun. 2014;5(1):4303.
- Otrin N. A Modular Platform for Growth of Hybrid and Polymer Membrane Systems by Vesicle Fusion [dissertation]. Magdeburg: Otto-von-Guericke-University; 2022.
- Otrin L, et al. Artificial Organelles for Energy Regeneration. Adv Biosyst. 2019;3(6):1800323.
- Frericks HL, Zhou DH, Yap LL, Gennis RB, Rienstra CM. Magic-angle spinning solid-state NMR of a 144 kDa membrane protein complex: E. coli cytochrome bo3 oxidase. J Biomol NMR. 2006;36(1):55-71.
- Seneviratne R, et al. A reconstitution method for integral membrane proteins in hybrid lipid-polymer vesicles for enhanced functional durability. Methods. 2018;147:142-9.
- Aimon S,et al. Functional reconstitution of a voltage-gated potassium channel in giant unilamellar vesicles. PLoS One. 2011;6(10):e25529.
- Dolder N, Müller P, von Ballmoos C. Experimental platform for the functional investigation of membrane proteins in giant unilamellar vesicles. Soft Matter. 2022;18(31):5877-93.
- Zhao Z,et al. Super-Resolution Imaging of Highly Curved Membrane Structures in Giant Vesicles Encapsulating Molecular Condensates. AdvMater. 2022;34(4):2106633.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında