Nöroimmün etkileşimlerin zamansal ve mekansal karakterizasyonu için salgılanan immün proteinlerin canlı fare beynine uygulanmasına yönelik özelleştirilebilir bir yöntem.
Yöntem makalesi
Nöroimmün Etkileşimleri İncelemek İçin Salgılanan İmmün Moleküllerin Hedefe Yönelik İntrakraniyal İletimi
Bu makalede
Özet
Özet
Sekrete edilen bağışıklık proteinlerinin sinir sistemi fonksiyonlarını etkilediği giderek daha fazla kabul edilse de, beynin karmaşık ortamı içindeki spasyotemporal dinamiklerini tanımlamada teknik engeller devam etmektedir. Örneğin, beyindeki temel bağışıklık hücre popülasyonlarından olan mikroglia, birçok farklı hücresel hedefle etkileşime giren çeşitli faktörler salgılar. Mikroglia kaynaklı proteinler; internalizasyon olmaksızın yüzey reseptörüne bağlanma, pasif membran transportu, fagositik alım veya endositoz aracılı alım gibi mekanizmalar via diğer hücre tiplerine sinyal gönderebilir. Burada, hücresel etkileşim mekanizmalarını ve buna bağlı fonksiyonel sonuçları in vivo incelemek için mikroglia kaynaklı sekrete bir proteinin lokal iletimine yönelik bir yöntem sunulmuştur . Protein örneklerinin iletim için nasıl hazırlanacağını, proteinin hedef beyin bölgelerine stereotaksik uygulanmasının nasıl gerçekleştirileceğini ve fiksasyona duyarlı proteinlerin immünohistokimya ile görselleştirilmesi için beyin dokusunun toplanması ve hazırlanmasında izlenecek en iyi uygulamaları açıklıyoruz. Bu yaklaşım, nöroimmün iletişimin spasyotemporal olarak kontrollü çalışmaları için çok yönlü bir çerçeve sağlayarak, bağışıklık kaynaklı proteinlerin nöronal ve beyin fonksiyonlarını nasıl dinamik olarak düzenlediğinin mekanistik olarak araştırılmasına olanak tanır.
Giriş
Nöroimmün iletişim veya sinir ve bağışıklık sistemleri arasındaki moleküler etkileşim, sağlık ve hastalıkların anlaşılması için temel olduğu ancak yakın zamanda saptanmıştır. Bir zamanlar bağışıklık sistemi aktivitesinden büyük ölçüde korunduğu düşünülen beyin1,2, artık sinir sisteminin vücut genelinde bağışıklık sinyalleri hem göndermesine hem de almasına olanak tanıyan oldukça dinamik immün nişler içerdiği kabul edilmektedir3. Bu güçlü, çift yönlü etkileşim, çoğunlukla ya beyinde ya da koroid pleksus, meninges ve perivasküler boşluklar gibi sinir sistemi arayüzlerinde yaşayan immünkompetan hücreler tarafından aracılık edilir4. Ancak, beyin parankiminde bağışıklık sinyalleri öncelikle, embriyonik gelişim sırasında beyni ilk kolonize eden uzun ömürlü, doku yerleşik makrofajlar olan mikroglia tarafından aracılık edilir. Mikroglialar genellikle fagositik fonksiyonlarına özel bir dikkat gösterilerek deneysel olarak araştırılsa da, çok çeşitli immün faktörler salgılayarak hem yakın çevreleriyle hem de uzun mesafeler boyunca etkileşime girerler5.
Enfeksiyonlar, yaralanmalar ve hastalıklar gibi kompleks, multifaktöryel durumların in vivo modellenmesi, stres altındaki sinir sisteminin bütünsel bir şekilde anlaşılmasını sağladığı için faydalı olsa da, birbirinden ayrıştırılması zor olan, yaygın ve çeşitli sonuçlara sahip bir faktörler silsilesine yol açar. Ayrıca, beyin bölgeleri arasındaki hücrelerin yüksek heterojenliği göz önüne alındığında, tekil faktörlerin nedensel salınımını ve buna bağlı etkilerini kesin olarak belirlemek zor olmaya devam etmektedir. Konum hassasiyetli bir enfeksiyon sonrası belirli faktörlerin aşırı ekspresyonuna izin veren lentiviral ve adeno-ilişkili viral vektörler gibi araçlar; nöronlar ve astrositler gibi diğer beyin hücrelerinden salgılanan faktörlerin çeşitli bağlamlardaki rollerinin araştırılmasını sağlamış olsa da, mikrogliaların bu şekilde spesifik ve güçlü bir şekilde modüle edilmesi şimdiye kadar zor olmuştur6. Bu nedenle, mikroglia kaynaklı sinyal moleküllerini beynin belirli bir konumuna iletebilme yeteneği, bu moleküllerin farklı bağlamlardaki kesin rollerini ve sonuçlarını birbirinden ayırmak için yararlı bir yöntem sunmaktadır.
Bu yöntemin amacı, ilgilenilen bir proteinin veya molekülün fonksiyonel etkilerinin aşağı akışta (downstream) araştırılmasına olanak sağlamak için, mikroglia kaynaklı faktörleri canlı bir fare beynine spatiotemporal olarak iletmektir. Ayrıca, bu intrakraniyal uygulama yöntemi, şu gibi diğer birçok bağlama ve soruya uyarlanabilir: aracılığıyla etkileşimli immün faktörler veya inhibitörler gibi birden fazla faktörün birlikte uygulanması ya da ilgili bir zaman seyri boyunca doku yanıtlarının incelenmesi. Bu protokol, immünohistokimyasal son noktalar için doku toplama ve hazırlama işlemlerini açıklayacak olsa da, qPCR veya protein bolluğu analizi için ilgilenilen bir beyin bölgesinden taze dondurulmuş doku punch örneklerinin toplanması gibi çeşitli diğer beyin son noktaları da bu uygulama yöntemiyle eşleştirilebilir. aracılığıyla Western blot veya ELISA ya da enjekte edilen bir beyin bölgesindeki nöronal aktivitenin elektrofizyolojik kayıtlarının gerçekleştirilmesi.
Protokol
Hayvanlarla ilgili tüm prosedürler, National Institutes of Health Laboratuvar Hayvanlarının Bakımı ve Kullanımı Kılavuzu'na uygun olarak ve araştırma kurumunun Kurumsal Hayvan Bakım ve Kullanım Komitesi (IACUC) tarafından onaylanan protokoller kapsamında yürütülmüştür. Burada ana hatları verilen tüm prosedürler, Duke University'deki IACUC tarafından incelenmiş ve onaylanmıştır. Kullanılan reaktifler ve ekipmanlar Materyaller Tablosu'nda listelenmiştir.
1. (Opsiyonel) İlgili işaretleyici ile enjekte edilecek maddenin hazırlanması
- İlgilenilen immün proteinin veya molekülün saflaştırılmış bir versiyonunu satın alın, izole edin veya oluşturun (protein optimizasyonu ve validasyon önerileri için Tartışma bölümüne bakınız).
- Gerekirse, proteinin kimyasal yapısına göre en uygun etiketleme stratejisini belirleyin. Örneğin, proteininizin belirli bölgeleri veya domenleri fonksiyonu için gerekliyse, bu bölgelerde konjugasyondan kaçının. Etiketleme sonrası normal protein fonksiyonunun validasyonu gerçekleştirilmelidir.
NOT: Saflaştırılmış proteinler için yaygın kimyasal etiketleme yaklaşımları, üretici talimatlarına göre genellikle sistein kalıntılarındaki tiyol gruplarına (maleimid veya iyodoasetamid boyaları) veya genellikle lizin kalıntılarındaki amin gruplarına (N-hidroksisüksinimid (NHS) ester veya izotiyosiyanat boyaları) konjugasyonu içerir. Konjugasyon işlemini gerçekleştirmek için standart tedarikçilerden kitler de satın alınabilir.- Kullanımdan önce, proteini tutmak ve bağlanmamış herhangi bir boyanın geçişine izin vermek için proteinleri ve boyayı uygun boyutlu bir kolondan santrifüjleyerek serbest boyanın uzaklaştırıldığından emin olun.
- Alternatif olarak, ilgilenilen proteinleri tespit için genetik olarak etiketleyin, bunları ilgili hücrelerde eksprese edin ve ardından saflaştırın. Etiket, proteine doğrudan füzyonlanabilir veya esnek bir linker aracılığıyla bağlanabilir; yaygın seçenekler arasında floresan proteinler (örneğin, eGFP, tdTomato, mCherry) ve kendi kendini etiketleyen etiketler (örneğin, HaloTag, SNAP-tag) yer alır.
- Hasara neden olabilecek dondurma-çözme döngülerinden kaçınmak için proteinleri alikotlayın. En iyi sonuçlar için, in vivo kullanımdan önce her bir dondurma-çözme döngüsü sayısı için normal protein fonksiyonunu valide edin. -80 °C'de saklayın.
NOT: Endojen ve ekzojen protein arasında ayrım yapılmasının gerekmediği durumlarda (örneğin, nakavt bir kemirgen modeline enjeksiyon yapıldığında) etiketlenmemiş protein yeterli olabilir. Deneysel koşulları optimize etmek için ampirik testler yapılmalıdır.
2. Cerrahi işlem için ekipmanların hazırlanması
- Aşağıdaki cerrahi aletleri, bir buhar indikatör şeridi ile birlikte otoklavla sterilizasyona uygun bir kaba yerleştirin: bistüri sapı, forseps, küçük makas, hemostat, matkap ucu (1,35 mm) ve yalnızca uçlara yönelik aseptik teknik için cerrahi örtü. Cerrahi aletleri sterilize edin. aracılığıyla otoklavlayın 121 °C 15–20 psi basınçta 30 dakika boyunca.
- Gerekli ek malzemeler: steril pamuk uçlu aplikatörler, povidon-iyot çözeltisi, %70 etanol, %0,9 salin, izofluran, cam çekme mikropipetler, steril bistüri uçları, tüy dökücü krem, göz kayganlaştırıcısı, doku yapıştırıcısı veya cerrahi sütürler, ısıtma pedi, terazi, hazırlanmış ilaçlar ve insülin şırıngaları ve cerrahi kayıt defteri.
- Cam çekimle hazırlanan mikropipetleri hazırlamak için, genellikle 1,0 mm civarında olan ve enjektöre uygun dış çapta, iç çapı ise 0,5 mm ile 0,8 mm arasında olan bir cam kapiler seçin. Bunu bir pipet çekiciye yerleştirin ve ardından dar ancak dayanıklı, konik bir uç oluşturacak ayarlarla çekim işlemini gerçekleştirin (bu ayarlar kullanılan cihaza göre değişiklik gösterecektir ve bireysel optimizasyon gerektirir).
NOT: Genellikle, daha düşük bir sıcaklık, parankime girerken bükülebilecek uzun ve esnek bir uç oluşmasını önlemeye yardımcı olur; düşük veya orta düzeyde bir çekme kuvveti ise, tıkanmaya veya enjeksiyon direncine neden olabilecek çok dar bir uç açıklığını önlemeye yardımcı olur. Çekilmiş tüm pipet uçlarını incelemek için bir diseksiyon mikroskobu kullanın ve yaklaşık bir iç çap açıklığı bırakmak için uç açıklığını ince bir pensle nazikçe kırpın. 20 µmEğer bir pah kırma aleti kullanılıyorsa, ...'dan küçük bir açı kullanın 35°. - Otoklavlanmış aletleri, ek malzemeleri ve enjeksiyon için hazırlanmış proteini buz üzerinde cerrahi alana getirin (Şekil 1A). Otoklavlanmış aletleri dikkatlice cerrahi bir havlu üzerine çıkarın ve tüm aletlerin uçlarını belirlenmiş steril alan merkezine yerleştirin (Şekil 1B,C). Matkap ucunu alanın merkezine yerleştirmek için hemostatı kullanın. Sapına steril bir skalpel ucu takın ve bıçak ucunu steril alan içerisinde tutun.
- Isıtma pedini önceden ısıtın 37 °C ve birden fazla cerrahi işlem gerçekleştiriliyorsa boncuk sterilizasyon cihazını açın.
- İnce uçlu bir iğne kullanarak mikropipet ucunu mineral yağı ile doldurun ve cam pipetin tüm uzunluğu boyunca hiç hava kabarcığı kalmadığından emin olun. Cam pipeti mikroenjektöre yerleştirin ve yükleyeceğiniz protein hacmini dikkatlice dışarı atın. İlgili proteini, yayınlanmış önerilere dayanan bir hacimde yükleyin.7 enjektörün içine aktarın, ardından enjektörü kenara alın.
3. Stereotaksik cerrahi prosedür
NOT: Tüm cerrahi işlemler yüksek havalandırmalı bir ameliyathane suitinde gerçekleştirilmiş olup, tüm personel eldiven, yüz maskesi, bone, galoş ve önlükten oluşan kişisel koruyucu ekipman kullanmıştır. İzofluran gazı maruziyeti bir sağlık riski oluşturduğundan, aktif karbon kanisterleri gibi bir geri kazanım sistemi gerektirir ve bu sistemler izofluran kullanımı öncesinde ve sonrasında tartılmalıdır. Anestezi vaporizatörü, havalandırma sistemleri ve geri kazanım ekipmanı gibi tüm ekipmanların kullanım öncesinde uygun şekilde sertifikalandırıldığından ve kalibre edildiğinden emin olun.
- Anestezi vaporizatörünün uygun hacimde izofluran ile doldurulduğundan emin olun ve oksijen akış hızını 1 L/dakika olarak ayarlayın. Fareyi, %3,5–4'lük bir iletim hızına ayarlanmış izofluran kamarasına yerleştirmeden önce ağırlığını kaydedin. Cerrahinin başlangıç saatini kaydedin.
- Hayvanın solunum hızındaki azalma takip edilmeli, ardından ayak parmak sıkıştırma refleksinin kaybı ile tam anestezi doğrulanmalıdır. Tam anestezi sağlandıktan sonra hayvan, burun konisi aracılığıyla 1 L/dak hızında sabit 2% izofluran akışı alması için stereotaks üzerindeki ısıtılmış ısıtma pedine taşınmalıdır. İzofluran akışı, hayvanın solunum hızına göre gerektiği şekilde ayarlanmalıdır.
- Her iki göze nazikçe bol miktarda göz kayganlaştırıcı uygulayın. Kayganlaştırıcının gözleri tamamen kaplamaya devam ettiğinden emin olmak için cerrahi işlem boyunca kontrol edin. Gerektiğinde yeniden uygulayın.
- Steril bir pamuklu aplikatör kullanarak, başın üst kısmına tüy dökücü krem uygulayın ve kürk üzerine masaj yaparak yedirin. Krem uygulamasının ardından, hem kremi hem de baş bölgesindeki tüyleri temizlemek için %0,9'luk salin solüsyonuna batırılmış aplikatörler kullanın. Başın üst kısmındaki tüm tüyler temizlenene kadar tüy dökücü krem uygulama ve temizleme işlemlerini tekrarlayın.
NOT: Tüy dökücü kremi, tüyleri zaten alınmış açıkta kalan cilde uygulamamaya veya kremi tüylere ovalayarak sürdükten sonra tek seferde yaklaşık 3 dakikadan fazla bekletmemeye dikkat edin. Tüy dökücü kreme uzun süre maruz kalmak cilt yanıklarına neden olabilir. - Hayvanın ağırlığına göre uygun miktarda preoperatif analjezik uygulayın. Kesin analjezik dozu, uygulama yolu ve zamanlaması IACUC tarafından incelenmeli ve onaylanmalıdır. Bu çalışmada 4 mg/kg meloksikam kullanılmıştır. aracılığıyla cerrahi başlangıçta uygulanan bir subkütan enjeksiyon.
- Hayvanın başını kulak barları arasında sıkıca sabitleyin, kafatasının mümkün olduğunca düz ve dengeli durmasını sağlayın. Herhangi bir hareket olmadığını doğrulamak için hayvanın başına hafifçe bastırın. Baş aşağı çökerse veya hareket ederse, hareket sona erene kadar kulak barlarını yeniden sabitleyin.
- Steril pamuklu aplikatörler kullanarak, baş bölgesine içeriden dışarıya doğru dairesel hareketlerle betadine uygulayın, ardından işlemi %70'lik etanol ile tekrarlayın.
- Povidon iyot uygulamasını tekrarlayın, ardından 70% etanolü 2 kez daha uygulayarak toplamda 3 uygulama yapın.
NOT: Burası artık steril alan olarak kabul edilmektedir ve bölgeye yalnızca sterilize edilmiş aletlerin girmesine izin verilir. - Bir skapel kullanarak, gözlerin hemen üzerinden kulakların yaklaşık orta noktasına kadar tek bir akıcı hareketle dikey bir insizyon yapın. Cildi nazikçe ayırmak ve kafatasını açığa çıkarmak için steril bir pamuklu aplikatör kullanın. Hem bregma hem de lambda noktalarını görebildiğinizi onaylayın, ardından skapel ucunu uygun tıbbi atık (kesici-delici alet) konteynerine dikkatlice atın.
- Steril matkap ucunu matkaba takmak için tırtıklı pens kullanın. Matkabı stereotaksik kola sabitleyin ve matkabı, kafatasına hafifçe değecek şekilde bregma merkezinin üzerine konumlandırın. Stereotaksik cihazdaki Z konumunu sıfırlayın.
- Doğru baş yerleşimi için kalite kontrol ölçümünü gerçekleştirmek için:
- Bregma noktasında sıfırlama yaptıktan sonra, matkap ucunu lambda noktasına taşıyın ve Z konumunu yeniden kafatası yüzeyine değecek şekilde ayarlayın. Lambda noktasındaki Z konumunu kaydedin.
- Matkap ucunu tekrar yukarı kaldırın, ardından bregma ile lambda'nın yaklaşık ortasına denk gelecek şekilde Y konumunda -2,1 mm hareket ettirin. X konumunu her iki yana -1,5 mm ve +1,5 mm hareket ettirerek, kafatasına tam temas ettiği andaki Z konumunu her iki nokta için de kaydedin.
- Kaydedilen her Z konumunun ... olduğundan emin olun <0,2 mm. Gerektiğinde ayarlayın.
- Bregmada koordinatları tekrar sıfırlayın, ardından stereotaksik kolu istediğiniz (X,Y) koordinatlarına taşıyın.
NOT: Yayınlanmış fare stereotaksik koordinat atlasları sıklıkla normal genç erişkin ağırlığındaki (~28 g) referans fareleri kullanır. Daha büyük veya daha küçük fareler bu referans koordinatlara tam olarak uymayabilir. Proteinin deneysel uygulamasından önce koordinatların doğruluğunu teyit etmek amacıyla bir boya ile pilot enjeksiyonlar yapılması önerilir. Koordinatları ayarlamak için bir başlangıç noktası olarak; faredeki bregma-lambda arası ölçülen mm cinsinden mesafenin, referans atlas tarafından önerilen koordinatla çarpılması ve ardından bu sonucun referans atlastaki bregma-lambda mesafesine bölünmesiyle elde edilen bregma-lambda düzeltme oranının kullanılması düşünülebilir. - Matkabı çalıştırın ve kafatasıyla temas etmek için kolu Z boyutunda yavaşça indirin. Alttaki beyin dokusuna temas etmediğinizden veya ona zarar vermediğinizden emin olarak kafatasını dikkatlice delin. Delik uygun şekilde açıldığında, beynin yüzeyi parlak ve nemli görünecektir.
NOT: Kesintili delme ve daha düşük bir delme hızı (1000 rpm), aşırı sürtünmeden kaynaklanan ısı riskini azaltmaya yardımcı olacak; delme sırasında veya sonrasında steril salin solüsyonu uygulanması ise kemik tozunun aerosolleşmesini azaltacaktır. Deney yapan kişinin risklerden korunması için KKE (yüz maskesi, göz koruması) kullanımı önemlidir. - Birden fazla enjeksiyon bölgesi uygulanacaksa, Adım 3.12'yi gerektiği kadar tekrarlayın.
- Matkabı stereotaksik koldan çıkarın. Birden fazla cerrahi işlem gerçekleştiriliyorsa, matkap ucunu matkaptan çıkarmak için steril, tırtıklı pens kullanın ve ucu boncuklu sterilizatöre yerleştirin. 10 saniye sonra, matkap ucunu boncukların arasından çıkarın ve cerrahi havlu üzerindeki steril alana yerleştirin.
- Steril, pamuk uçlu bir aplikatörü %0,9'luk salin çözeltisine batırın ve bunu açığa çıkmış kafatasını ıslatmak ve delme işlemi sırasında oluşan tozları temizlemek için kullanın. Hayvanın göz lubricantini kontrol edin ve gerekirse daha fazla uygulayın.
4. İlgili proteinin enjeksiyonu ve cerrahi iyileşme
- Yüklü enjektörü stereotaksik kola sabitleyin. Bregmada yeniden sıfırlama yapın ve istenen (X,Y) koordinatlarına göre ayarlayın. Enjektör ucunu, kafatasına açılan deliğin içinden, kafatasının hemen altında beyin yüzeyine ulaşana kadar indirin. Z düzlemini sıfırlayın.
- Enjektör ucunu, hedeflediğiniz Z koordinatının biraz ötesine (yaklaşık -0,2 mm daha) çok yavaşça yerleştirin ve ardından ucu doğru koordinata geri çekin.
- İstenen proteini, dakikada 500 nL'yi aşmayacak bir hızla yavaşça enjekte edin. Enjeksiyon zamanını kaydedin.
NOT: Doku yaralanması ve hasarından kaçınırken istenen uzaysal hedeflemeyi sağlamak için enjekte edilen hacimleri dikkatle değerlendirin. İlgi duyulan bölge başına hacmi ve uygulama hızını optimize etmek için ampirik testler yapılmalıdır (bakınız Tartışma daha fazla ayrıntı için). - Enjekte edilen maddenin geri akışını önlemek için, enjeksiyon tamamlandıktan sonra enjektörü 5-10 dakika daha yerinde tutun.
- Enjektörü, 1–2 dakika sürecek şekilde, yavaşça beyinden yukarı doğru geri çekin.
- Birden fazla enjeksiyon gerçekleştiriliyorsa Adım 4.1–4.5'i tekrarlayın.
- İşlem tamamlandığında, enjektörü stereotaksik cihazdan çıkarın.
- Cerrahi insizyon bölgesini yeniden nemlendirmek için saline solüsyona batırılmış steril bir pamuklu aplikatör kullanın. Cilde topikal olarak bupivakain veya tercih edilen başka bir lokal anestetik uygulayın.
- İnsizyon bölgesini kapatmak için steril pens kullanın ve yarayı mühürlemek için doku yapıştırıcısı uygulayın (veya sütür ya da yara zımbaları gibi tercih edilen diğer yöntemleri kullanın).
NOT: Doku yapıştırıcısının hayvanın gözlerine veya insizyon alanı dışındaki herhangi bir deri bölgesine temas etmemesine dikkat edin. Doku yapıştırıcısını, üretici tarafından sağlanan aplikatörlerden daha kontrollü bir şekilde uygulamak için steril bir pipet ucu ve pipet kullanılabilir. - Kulak barlarını ve burun konisini gevşetin ve hayvanın iyileşmesi için onu ısıtılmış, temiz bir kafese yerleştirin. Hayvanın izofluran anestezisinden çıkarıldığı saati kaydedin.
- Hayvanı takip edin ve hayvanın ilk kez ayakta görüldüğü zamanı kaydedin. En az 30 dakika boyunca tamamen hareket edebildiğinde, hayvanı hidrojel ve yeniden nemlendirilmiş öğütülmüş yem gibi ek bakım destekleri içeren temiz bir ana kafese geri yerleştirin.
NOT: İyileşen hayvandan akut olarak (24 saat içinde) doku toplanmadığı sürece, herhangi bir advers reaksiyonu ve normal yara iyileşmesini değerlendirmek ve sağlıklı iyileşmeyi teyit etmek için hayvan, cerrahi müdahaleden sonraki ilk hafta boyunca günde bir kez tartılmalı ve izlenmelidir. Postoperatif analjezikler, IACUC tarafından incelenen ve onaylanan protokollere uygun olarak uygulanmalıdır; cerrahi sonrası ilk 3 gün boyunca her 24 saatte bir 4 mg/kg meloksikam deri altına uygulanmıştır. Tüm gözlemler bir kayıt defterine kaydedilmelidir. Bir hayvanda azalmış hareketlilik veya kilo kaybı gibi hastalık davranışları gözlemlenirse, >ameliyat öncesi ağırlığın %15'i veya sağlıksız duruma işaret eden diğer belirtiler görüldüğünde, ya konsültasyon için bir veteriner hekime başvurulmalı ya da hayvan insani yöntemlerle sakrifiye edilerek çalışmadan çıkarılmalıdır.
5. İmmünohistokimyasal prosedür için dokunun hazırlanması
- Aşağıdaki malzemeleri hazırlayın: 1x PBS, pens, küçük makas, 30 mL şırınga veya perfüzyon pompası, 26 gauge kelebek iğne, iki adet 15 mL konik tüp, PBS içinde %4 paraformaldehit (PFA), üç adet küçük tartım kabı (dokudaki PFA'yı yıkamak için), PBS içinde %30 sakkaroz.
NOT: PFA karsinojeniktir ve özel taşıma ile bertaraf gerektiren toksik buharlar yayar. PFA'nın tüm hazırlık, kullanım ve bertaraf işlemleri bir kimyasal çeker ocak veya biyogüvenlik kabininde gerçekleştirilmelidir. Sıvı atıklar ve PFA ile temas eden tüm katı maddeler (örneğin pipet uçları, tüpler, tartım kapları vb.) dahil tüm PFA atıkları, çalışmanın yürütüldüğü kurum tarafından belirtilen tehlikeli atık konteynerlerine konulmalıdır. - Ötanazi prosedürleri için kurumsal yönergeleri izleyin. Ölüm onaylandıktan sonra, hayvanı bir tepsi veya kovanın üzerine taşıyın ve kalbi açığa çıkarmak için pens ve makas kullanarak hayvanın karın boşluğunu açın.
- Bir pompa kullanarak veya 30 mL'lik bir şırınga ile manuel olarak, hayvanı soğuk 1x PBS ile transkardiyal olarak perfüze edin.
NOT: Pıhtılaşmayı önlemek için sakrifikasyon ile perfüzyon arasındaki süre olabildiğince kısa tutulmalı ve birden fazla fareden doku toplanacaksa bu işlem her seferinde tek bir hayvan için yapılmalıdır. - Tüm beyni kafatasından çıkarın ve en fazla 2 saat boyunca %4 PFA çözeltisi içeren 15 mL'lik bir konik tüpe taşıyın. Dokunun aşırı fiksasyonuna uğramamasını sağlamak için her beynin PFA'ya yerleştirildiği saati kaydedin.
NOT: Doku fiksasyonunun optimizasyonu, ilgilenilen hedefler için ampirik olarak test edilmelidir. Örneğin, C1q'nun nöronal ribonükleoprotein kompleksleri ile etkileşimleri aşırı fiksasyona karşı hassastır8. Uygun bir fiksasyon yöntemi seçimi hakkında daha fazla ayrıntı için lütfen Tartışma bölümüne bakın. - Uygun bir doku fiksasyon süresinden sonra, dokudaki kalıntı PFA'yı temizlemek için PBS ile üç kez yıkama yapın.
- Beyni, PBS içinde %30 sakkaroz çözeltisi içeren 15 mL'lik bir konik tüpe aktarın ve beyin dibe çökene kadar 4 °C'de saklayın. Bu işlem ortalama 1–3 gün sürer.
- Fikse edilmiş beyinleri gömmek için aşağıdaki malzemeleri hazırlayın: PBS içinde %30 sakkaroz, dondurma gömme ortamı, uygun boyutlarda tek kullanımlık dondurma kalıpları (örneğin 22 mm x 22 mm), jilet, pens, serolojik pipet ve uçlar.
- Gömme çözeltisini oluşturmak için dondurma gömme ortamını ve %30 sakkaroz çözeltisini 1:1 oranında karıştırın. 22 mm x 22 mm'lik kalıplar kullanılıyorsa, kalıp başına yaklaşık 5 mL gömme çözeltisi gereklidir. Farklı viskoziteleri birleştirmek için vorteksleyerek iyice karıştırın.
- Sagital beyin kesitleri için, beyni orta hattından kesmek üzere bir jilet kullanın (Şekil 2A). Her bir doku kalıbını, hemisfer bilgisi dahil olmak üzere numune detaylarıyla etiketleyin. Hemisferler tercihe göre ayrı kalıplara yerleştirilebilir veya orta hat kalıbın tabanına bakacak şekilde birlikte monte edilebilir (Şekil 2B).
- Beyin dokusunu çevreleyecek ve tamamen içine gömecek uygun miktarda gömme çözeltisi ekleyin. Dolu kalıpları oda sıcaklığında 1 saat bekletin.
NOT: Gömme çözeltisinin vorteksleme nedeniyle hala çok kabarcıklı olması sorun değildir. 1 saatlik inkübasyon süresi, kabarcıkların dağılması için zaman tanır. - Kuru buz hazırlayın ve dondurma işlemi için düz bir yüzey oluşturmak amacıyla kuru buzun üzerine düz bir metal raf veya plaka yerleştirin.
- Dolu her bir kalıbı, kuru buz üzerinde mümkün olduğunca düz duracak şekilde nazikçe yerleştirin. Beyinlerin hala konumunda olduğundan emin olmak için kalıpları taşıdıktan sonra ancak dondurma işlemi başlamadan önce pens kullanın. Gömme çözeltisi tamamen opak hale geldiğinde, tamamen donmuş demektir ve gömülü dokular, immünohistokimya yapılana kadar -80 °C'ye taşınabilir (Şekil 2C).
- Yüklü lamlar üzerine 15–40 µm sagital kesitler toplamak için bir kriyostat (hazne sıcaklığı: -20 ila -25 °C, kafa sıcaklığı: -15 ila -18 °C) kullanın; pap kalemi bariyeri uygulanabilmesi için kesitler arasında yeterli boşluk bıraktığınızdan emin olun. Tek bir lam üzerine üç sagital kesit uygun aralıklarla yerleştirilebilir.
NOT: Hassas bir protein veya hassasiyeti bilinmeyen bir protein görselleştirilecekse, yalnızca bir immünohistokimya deneyi için gereken kesitleri toplayın ve işlemi aynı gün gerçekleştirin. Gömülü doku saklanabilir ve gelecekteki deneyler için -80 °C'de tekrar dondurulabilir. Alternatif olarak, kesilmiş doku içeren lamlar -80 °C'deki lam kutularında saklanabilir.
6. Enjekte edilen protein için immünohistokimyanın gerçekleştirilmesi
- İmmünohistokimya için malzemeleri toplayın: 1x TBS, pap kalem, saponin, sığır serum albümini (BSA), ilgili primer antikorlar, sekonder antikorlar, Sudan Black B bazlı otofloresans söndürücü, %70 etanol, DAPI içeren kapatma medyumu, lameller, oje.
NOT: Ticari olarak mevcut otofloresans söndürme çözeltileri genellikle dikkatli kullanım ve bertaraf gerektiren dimetilformamid (DMF) içerir. Eldiven kullanmadan işlem yapmayın ve kullanılan tüm çözeltileri, çalışmanın yürütüldüğü kurumun politikalarına uygun olarak organik atık konteynerine toplayın. - Lam üzerindeki doku kesitlerine 10 dakikalık yıkama için transfer pipetiyle 1x TBS uygulayın.
- 1x TBS yıkama çözeltisini aspire edin, ardından her bir doku kesitinin etrafına pap kalemle hidrofobik bir bariyer uygulayın.
NOT: Bunun ilk 1x TBS yıkamasından sonra yapılması, lamlara yapışıp bariyeri daha az etkili kılabilecek fazla gömme çözeltisinin uzaklaştırılmasına yardımcı olur. Bariyeri uygulamadan önce fazla çözeltiyi temizlemek için bir görev mendili (task wipe) kullanın. Ancak, rehidre edilmiş dokunun kurumasına izin vermemeye dikkat edin. - 1x TBS ile 10 dakikalık yıkamayı iki kez daha tekrarlayın (toplam 3 yıkama).
- Permeabilizasyon tamponunu hazırlayın: 1x TBS'ye %0,1 saponin ekleyin. Hazırladıktan sonra 2 hafta içinde kullanın. Her kesite ~100 µL uygulayın ve oda sıcaklığında 10 dakika inkübe edin.
- Bloklama tamponunu hazırlayın: 1x TBS'ye %0,1 saponin ve %1 BSA ekleyin. Bloklama tamponu ayrıca primer ve sekonder çözeltiler için de kullanılacağından, fazla miktarda hazırlayın ve 4 °C'de saklayın. Hazırladıktan sonra 2 hafta içinde kullanın. Permeabilizasyon tamponunu aspire edin ve her kesite ~100 µL bloklama tamponu uygulayın. Oda sıcaklığında 1 saat inkübe edin.
- Primer çözeltiyi hazırlayın: Bloklama tamponuna primer antikorları ekleyin. Primer antikoru 1:500 konsantrasyonuyla başlatın ve sonuçlara göre ayarlayın. Bloklama tamponunu aspire edin ve her kesite ~100 µL primer çözelti uygulayın.
NOT: Bir hedef proteinin endojen floresan sinyalini artırmak için, etikete karşı bir primer antikor (örneğin, anti-GFP antikoru) kullanılarak amplifikasyon yapılabilir. - Lamları primer çözelti içinde gecelik 4 °C'de saklayın.
NOT: Gece boyunca buharlaşmayı önlemek için her kesitte bol miktarda primer çözelti olduğundan emin olun ve lamların saklandığı yere ek nem ekleyin. - Primer çözeltiyi, oda sıcaklığında 10 dakika boyunca üç kez 1x TBS ile yıkayarak uzaklaştırın.
- Sekonder çözeltiyi hazırlayın: Bloklama tamponu çözeltisine sekonder antikorları ekleyin. Sekonder antikoru 1:200 konsantrasyonuyla başlatın ve gerektiği gibi ayarlayın. Her bir doku kesitine ~100 µL çözelti uygulayın ve ışıktan korumak için üzerini kapatarak oda sıcaklığında 1 saat inkübe edin.
NOT: Bu adımda lamlar ışıktan korunmuş halde tutulmalıdır. - Sekonder çözeltiyi, oda sıcaklığında 10 dakika boyunca 1x TBS ile yıkayarak uzaklaştırın.
- Otofloresans söndürme çözeltisini üretici talimatlarına göre taze olarak hazırlayın. 20x söndürme çözeltisini %70 moleküler derece etanole seyrelterek 1x çalışma çözeltisi hazırlayın.
- Lamları tek tek alarak 1x TBS'yi aspire edin ve 1x söndürme çözeltisi uygulayın. Çözeltinin doku kesitleri üzerinde hareket etmesini sağlamak için lamı 20–30 saniye boyunca nazikçe döndürün.
- Söndürme çözeltisini bir atık konteynerine boşaltın, ardından transfer pipeti kullanarak her kesite TBS uygulayın, TBS'yi atık konteynerine boşaltın ve TBS berraklaşana kadar (genellikle 2–3 kez yeterlidir) TBS yıkamalarını hızlıca tekrarlayın.
- Söndürme çözeltisi adımlarını her lam için tekrarlamadan önce, dokunun kurumasını önlemek için kesite 1x TBS uygulayın.
- Lamları tek tek alarak TBS'yi tamamen aspire edin, ardından her bir doku kesitine en az bir damla DAPI içeren kapatma medyumu uygulayın. Lamın üzerine bir lamel yerleştirin ve kapatma medyumunun buharlaşmasını veya lamelin hareket etmesini önlemek için lamelin kenarlarını oje ile mühürleyin. Tüm lamlar için işlemi tekrarlayın.
- Hemen görüntüleme yapılmayacaksa, uzun süreli saklama için lamları -20 °C'de tutun.
Sonuçlar
C1q, klasik kompleman yolunun kilit bir üyesi olarak doğuştan gelen bağışıklık sisteminde tanımlanmış rolleri olan ve vücut genelinde yüksek düzeyde ifade edilen büyük (~450 kD) bir proteindir. Ancak, C1q'nun beyindeki fonksiyonel rolleri hala araştırılmaktadır. Beyindeki C1q, öncelikle beynin yerleşik bağışıklık hücresi popülasyonu olan mikroglia tarafından üretilir ve onlardan salınır9. C1q'nun normal beyin gelişimi boyunca sinaptik budama, öğrenme ve hafıza gibi süreçlerdeki ve hastalık durumlarındaki rolü defalarca gösterilmiştir10,11,12,13,14. C1q'nun, hem kemirgenlerde hem de insan dışı primatlarda, beyin yaşlandıkça nöronal yapıların içinde veya hemen bitişiğinde biriktiği gözlemlenmiştir9,15,16. Laboratuvarımız, yaşlanma sırasında beyinde C1q birikiminin fonksiyonel sonuçlarıyla ilgilenmektedir. Bu çalışma, yetişkin ve yaşlanan kemirgenlerde C1q'nun, RNA bağlayan proteinler de dahil olmak üzere nöronal hücre içi proteinlerle etkileşime girdiğini ortaya koymuştur8. T hücrelerinin daha önce diğer hücre tiplerinden türetilen C1q'yu internalize ettiği gösterildiğinden17, nöronların da ekzojen C1q'yu in vivo internalize edip edemediğini belirledik.
Bu çalışmada öncelikle 3 aylık erkek farelere 2 µL C1q proteini ile tek taraflı intraserebroventriküler (ICV) enjeksiyonlar yapılmıştır. C1q vahşi tip yetişkin beyinde eksprese edildiği için iki yaklaşım kullanılmıştır: ilk olarak, C1q proteini bir C1q -/- (knockout) fareye enjekte edilmiş ve ikinci olarak, C1q +/+ (vahşi tip) bir hayvanda doğal ve ekzojen C1q proteinini ayırt edebilmek için C1q, 594-maleimid konjugasyonu ile floresan olarak işaretlenmiştir. Protein, 10 mM HEPES, 300 mM NaCl, pH 7.2 içeren bir tampon çözelti içinde süspanse edilmiş 1 mg/mL konsantrasyonda uygulanmıştır. Sol hemisfer ICV enjeksiyonu için şu stereotaksik koordinatlar kullanılmıştır: X = +1.0 mm, Y = -0.4 mm, Z = -2.5 mm ve hacim 500 nL/min hızla enjekte edilmiştir. Geri akışı azaltmak için, enjeksiyon amacıyla kullanılan cam çekme iğne, enjeksiyonun durmasından sonra çıkarılmadan önce 5 dk boyunca yerinde bırakılmıştır. Doku, enjeksiyondan 1 saat sonra toplanmış ve sagital kesitlerde immünohistokimyasal analiz için işlenmiştir. Başarılı bir enjeksiyon, stereotaksik olarak hedeflenen bölgede lokalize floresans ile sonuçlanmalıdır.
İlk olarak, C1q -/- farelerde, tüm immünohistokimya prosedürü (Adımlar 6.1–6.17) tamamlandıktan sonra sol (Şekil 3A) ve sağ (Şekil 3B) hemisferin 30 µm'lik sagital kesitlerini görüntüledik. Nöronal somaları (siyan) görselleştirmek için bir anti-NeuN antikoru ve 1 saat önce sol ventriküle enjekte edilen etiketlenmemiş C1q'yı görselleştirmek için bir anti-C1q antikoru (kırmızı) kullanıldı. Sol hemisferin periventriküler parankiminde bol miktarda C1q gözlemlenmiş olup, hipokampal CA3'te nöronal hücre gövdeleri ile C1q arasında, endojen C1q ekspresyonuna sahip yaban tipi bir farede gözlemlediğimize benzer şekilde yüksek kolokalizasyon saptanmıştır (Şekil 3A). Beklendiği üzere, enjeksiyondan 1 saat sonra kontralateral hemisferde ventriküller çevresinde (veya parankimin herhangi bir yerinde) enjekte edilen C1q gözlemlenmemiştir (Şekil 3B). Ardından, ICV yoluyla C1q-594 enjekte edilen C1q +/+ yaban tipi (C57BL/6J) farelerin beyinleri görüntülendi. Burada, yalnızca otofloresans söndürme ve DAPI (mavi) ile lamelle kapatma işlemleriyle (Adımlar 6.12–6.17), C1q-594'ün (macenta) 30 µm'lik sagital kesitlerde görselleştirilebildiği onaylandı. Sol (enjekte edilen) hemisferde, floresanla etiketlenmiş enjekte C1q (macenta) aynı periventriküler dağılımda gözlemlenmiştir (Şekil 3C).
Nöronal kolokalizasyonu doğrulamak amacıyla, iki adet 2 aylık erkek C1q -/- fare ile ikincil bir deney gerçekleştirilmiştir. Farelerin bir hemisferine 2 µL C1q-594 ICV enjeksiyonu yapılırken, diğer hemisferine 2 µL ısı ile inaktive edilmiş (HI) C1q-594 enjekte edilmiştir. Isı inaktivasyonu, 594-maleimid konjugasyonunu takiben, hazırlanan proteinin yarısının 56 °C'ye ayarlanmış bir ısı bloğunda 30 dk bekletilmesiyle gerçekleştirilmiştir. Isı inaktivasyonunun, doğal C1q protein yapısını değiştirdiği ve aktivasyonu bozduğu daha önce gösterilmiştir18. Süspansiyon tamponunda (50 mM HEPES, 150 mM NaCl, pH 7.5) 200 µg/mL konsantrasyondaki normal, doğal C1q çözelti içerisinde çözünürdür ve brightfield mikroskobunda herhangi bir görünür agregat oluşturmaz (Şekil 4A). Buna karşın, aynı protein preparatı ısıtıldığında, protein konformasyon değişikliğine işaret eden görünür agregatlar brightfield altında gözlemlenmiştir (Şekil 4B). Ardından, HI-C1q'nun in vivo enjeksiyonunun C1q'nun nöronal alımını değiştirip değiştirmeyeceği belirlenmiştir. Beyinler enjeksiyondan 1 s sonra toplanmış ve her bir hemisfer yukarıdaki protokolde açıklandığı gibi aynı şekilde işlenmiştir. Nöronları tanımlamak için 20 µm sagital kesitlerde immünohistokimya uygulanmıştır. NeuN+ nöronları (camgöbeği) ve C1q-594'ü (kırmızı) görüntülemek için hipokampal CA3 bölgesinden aynı ayarlarla 40x görüntüler alınmıştır (Şekil 5A,B). Normal C1q-594 enjekte edilen hemisferde güçlü C1q işaretlemesi gözlemlenirken (Şekil 5A), HI-C1q-594 enjekte edilen hemisferlerde CA3'te C1q-594 gözlemlenmemiştir; ancak floresan protein ventrikül kenarları çevresinde toplanmış halde görülebilmiştir (Şekil 4C), bu durum C1q proteininin normal nöronal alım fonksiyonundaki bir değişiklikle uyumludur. Körleme yöntemiyle çalışan bir deneyci tarafından 8 adet 40x görüş alanında NeuN+ hücrelerin manuel kantifikasyonu, hemisferler arasında CA3'teki nöron yoğunluğunda herhangi bir değişiklik olmadığını ortaya koymuştur (Şekil 5D); ancak C1q+ olan nöronların yüzdesi, HI-C1q-594 enjekte edilen hemisferlerde iki kuyruklu t-testi ile anlamlı derecede azalmıştır (p = 0.026, n = 2 hayvan, hayvan başına her hemisferden 2 görüntü analiz edilmiştir) (Şekil 5C).
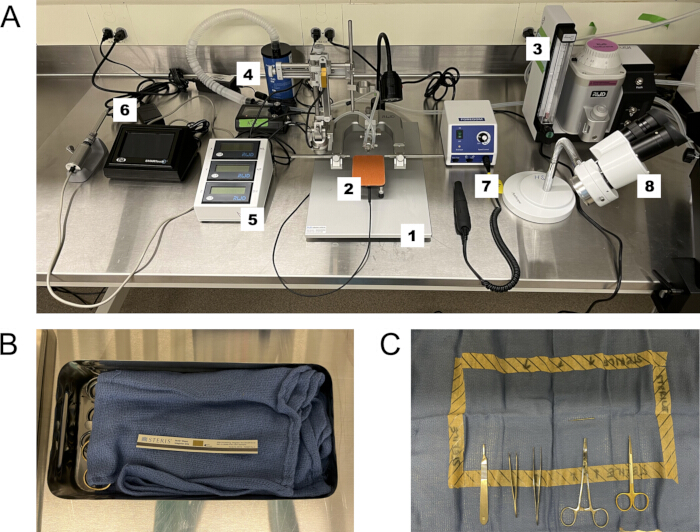
Şekil 1: Cerrahi kurulum ve cerrahi steril alan hazırlığı. (A) Cerrahi ekipman: 1. Stereotaks, 2. Kemirgen ısıtıcı, 3. İzofluran vapörizatörü, 4. İzofluran tahliye kanisteri, 5. Dijital stereotaks kolu, 6. Mikroenjektör, 7. Matkap, 8. Stereo mikroskop. (B) Otoklavlanmış aletler ve steriliteyi doğrulamak için buhar indikatör şeridi bulunan steril alan cerrahi havlusu. (C) Otoklavlanmış aletler, otoklavlanmış cerrahi havlu üzerinde belirlenen steril alana dikkatlice "uçları içe bakacak şekilde" yerleştirilir. Saplar steril merkezin dışında kalır ve aletlerin uçları, betadine ve %70 etanol ile sterilizasyondan sonra yalnızca hayvanla temas etmelidir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
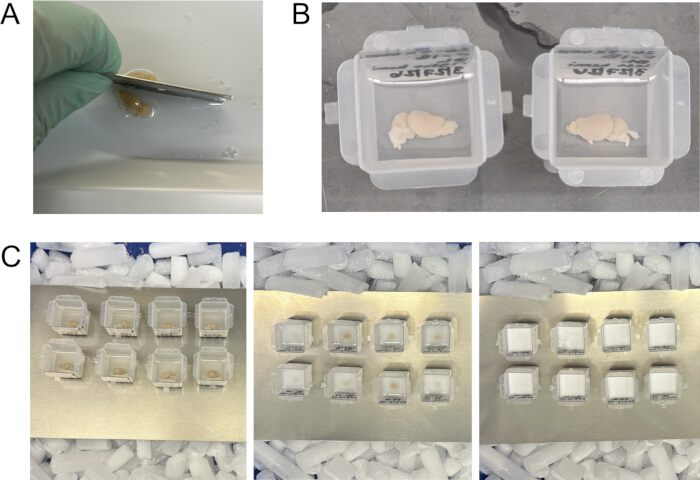
Şekil 2: Sagittal kesit için beyin işleme ve dondurma. (A) Bir jilet yardımıyla beyni orta hattından kesin, ardından her bir hemisferi orta hat tarafı aşağı gelecek şekilde bir dondurma kalıbına yerleştirin. (B) Kalıpları, dondurma gömme ortamı ile PBS içindeki %30 sükrozun 50:50 karışımıyla doldurun. (C) Beyinleri kalıplar içinde kuru buz üzerinde dondurun (sol). Tamamen donduklarında opak hale geleceklerdir (sağ). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
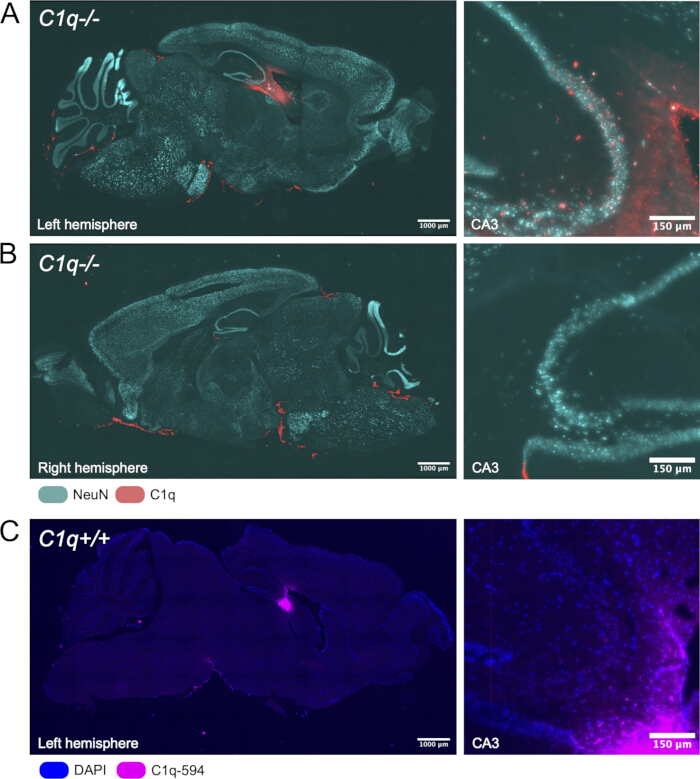
Şekil 3: C1q proteininin intraserebroventriküler (ICV) uygulamasının enjeksiyondan 1 saat sonraki temsili sonuçları. (A) Enjekte edilen hemisferde enjekte edilen C1q proteini (kırmızı) ve NeuN+ nöronal somaların (camgöbeği) sagital kesiti ve ventrikül bitişiğindeki CA3 hipokampal bölgesinin bir ek görüntüsü. (B) Aynı hayvanda enjeksiyonun karşıt hemisferinin sagital kesiti; enjekte edilen C1q proteini (kırmızı) ve NeuN+ nöronal somalar (camgöbeği) ile CA3'ün bir ek görüntüsü. (C) ICV yoluyla 594-maleimid konjugasyonu kullanılarak floresanla işaretlenmiş C1q (macenta) enjekte edilen yaban tipi bir hayvanın sagital kesiti; immünohistokimya ile amplifiye edilmemiş ancak DAPI (mavi) ile kapatılmış ve CA3'ün bir ek görüntüsü. Sol görüntü ölçek çubukları = 1000 µm, sağ görüntü ölçek çubukları = 150 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
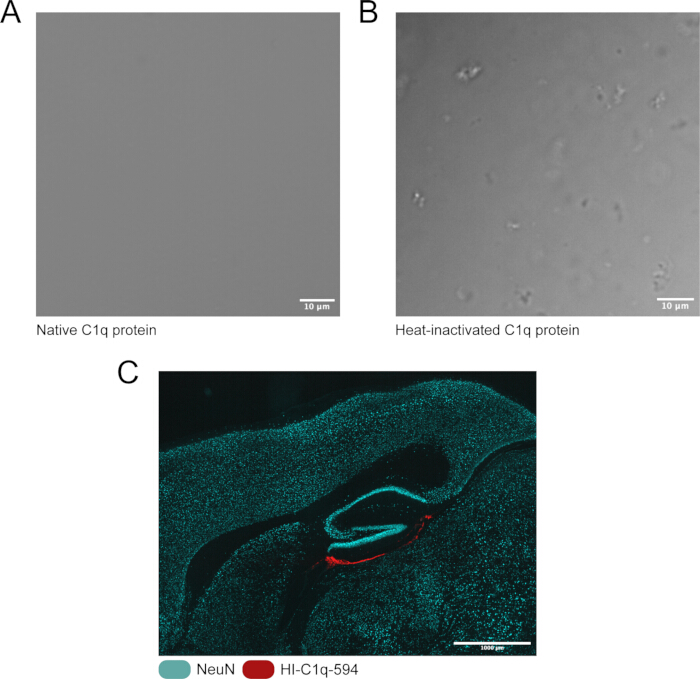
Şekil 4: C1q proteininin ısı ile inaktivasyonu. (A) Tampon çözeltide (50 mM HEPES, 150 mM NaCl, pH 7.5) 200 μg/mL konsantrasyonda süspande edilmiş doğal C1q proteininin brightfield mikroskobu ile görüntüsü. (B) Aynı tampon çözeltide ve aynı konsantrasyonda süspande edilmiş aynı C1q protein kaynağının, brightfield mikroskobu ile görüntülenmeden önce 56 °C'de 30 dk boyunca ısı işlemine tabi tutulmuş hali. (C) ICV enjeksiyonundan 1 sa sonra sagital bir kesitte ısı ile inaktive edilmiş (HI)-C1q-594 (kırmızı) ve NeuN+ hücrelerin (siyan) lokalizasyonu. Üst ölçek çubuğu = 10 µm, alt ölçek çubuğu = 1000 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
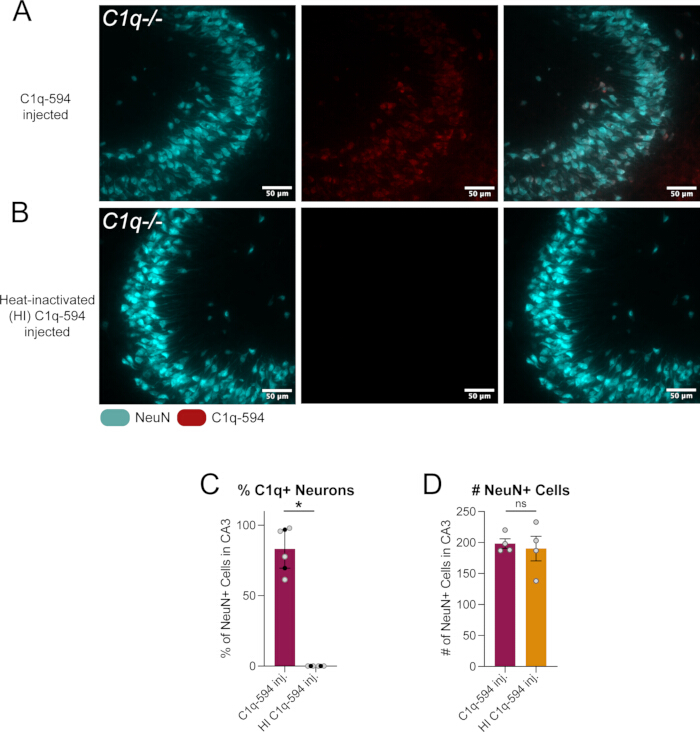
Şekil 5: Hipokampustaki nöronlara normal ve ısı ile inaktive edilmiş C1q protein alımının kantifikasyonu. (A) C1q-594'ün 1 saat önce enjekte edildiği ventriküle komşu hipokampusun CA3 bölgesinin sagital kesiti. NeuN+ nöronal somalar (siyan), C1q-594 (kırmızı) ve ikisinin üst üste bindirilmiş görüntüsü. (B) Isı ile inaktive edilmiş (HI)-C1q-594'ün 1 saat önce enjekte edildiği ventriküle komşu hipokampusun CA3 bölgesinin sagital kesiti. NeuN+ nöronal somalar (siyan), C1q-594 (kırmızı) ve ikisinin üst üste bindirilmiş görüntüsü. (C) 40x görüş alanındaki NeuN+ hücrelerin yüzde kaçının C1q-594+ olduğunun kantifikasyonu, çift kuyruklu t-testi. (D) 40x görüş alanındaki NeuN+ hücre sayısının kantifikasyonu, çift kuyruklu t-testi. Ölçek çubukları = 50 µm. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
| Protein Etiketleme | Antikor | |
| Görselleştirme | Doğrudan, bir antikora bağımlı değildir | Diğer proteinlerle çapraz reaktivite gösterebilir, antijen bulunabilirliğine bağımlıdır |
| Hazırlık | Etiketleme protein yapısını ve fonksiyonunu değiştirebileceğinden, ilgilenilen proteinin hazırlığı ve doğrulanması daha uzun ve teknik bir süreçtir. Reaksiyon verimleri düşük olabilir ve yüksek miktarda başlangıç proteini gerektirebilir | Hazırlık gerektirmez, birçok antikor ticari olarak mevcuttur ve halihazırda doğrulanmıştır |
| Deneysel Esneklik | İstenirse canlı izleme mümkündür | Fiksasyon gerektirir |
| Hassasiyet | Stokiyometri nedeniyle sınırlı hassasiyet | Amplifikasyona olanak tanır |
Tablo 1: Protein etiketlemenin avantajları ve dezavantajları karşıantikor saptama.
Tartışma
Ortaya çıkan kanıtlar, mikrogliaların, giderek daha karmaşıklaşan bir salgılanmış faktör repertuvarı aracılığıyla yönetilen MSS homeostazındaki kritik rolünü desteklemektedir5. Mikroglia kaynaklı faktörlerin tanımlanmış bir uzay-zamansal biçimde iletilebilme yeteneği, çeşitli çevresel ve genetik koşullar altında karmaşık nöroimmün iletişimi çözmek için değerli bir araç sunar.
Bu yöntem, çeşitli biyolojik soruları yanıtlamak için kolayca uyarlanabilir. Bu yöntem daha önce, çok büyük bir protein olan C1q'nun nöronal fonksiyonlardaki rollerini daha iyi anlamak için kullanılmış olsa da8, diğer büyük proteinlerin yanı sıra sitokinler ve kemokinler gibi küçük proteinlerin rollerini araştırmak için de uygulanabilir. Sitokinlerin ve kemokinlerin immün rolleri oldukça iyi anlaşılmış olsa da, in vivo ortamda bu faktörler genellikle bir stresöre yanıt olarak, birlikte ve yaygın bir şekilde salınırlar. Ayrıca, farklı immün faktörlerin immün olmayan/kanonik olmayan ve genellikle homeostatik rolleri giderek daha belirgin hale gelmektedir. Bu yöntemin kullanımı, belirli faktörlerin izole bir şekilde ve belirli beyin bölgelerinde araştırılmasına, hatta bu faktörlerin homeostazdaki rollerinin incelenmesine olanak tanıyacaktır. Bu protokolün bir diğer faydalı uygulaması, ilgi duyulan proteinlerin nakavt hatları veya belirli hastalık durumları modelleri gibi transgenik fare hatlarına uygulanması olacaktır. Söz konusu proteinin endojen ekspresyonuna sahip olmayan bir farede, ilgi duyulan proteinin kesin lokalizasyonunu ve miktarını kontrol edebilme yeteneği, proteinin akut ve lokalize uygulamalarının davranışsal bir değişiklik gibi bir etkiyi tetikleyip tetiklemediğini belirlemek için kullanılabilir. Alternatif olarak, enjekte edilen faktörün fonksiyonu için önemli olduğu varsayılan belirli bir reseptörden veya sinyal proteininden yoksun olan transgenik bir hatta enjeksiyon yapılabilir.
Ek olarak, bir proteinin fonksiyonuna dair mekanistik anlayışımızı geliştirmek için mikrogliya kaynaklı faktörlerin intrakraniyal uygulaması, diğer faktörlerin enjeksiyonu ile eş zamanlı olarak gerçekleştirilebilir. Örneğin, mikrogliya kaynaklı bir protein olan C1q'nun nöronlara nasıl girdiğini ve bunların translasyonel mekanizmalarıyla nasıl etkileşime girdiğini belirlemek amacıyla, daha önce bu tekniği kullanarak C1q enjeksiyonundan 30 dk önce bir endositoz inhibitörünü eş zamanlı olarak uyguladık. İnhibitörle birlikte uygulama nöronlar içindeki C1q miktarında anlamlı bir azalmaya yol açtığından, bu sayede C1q'nun nöronlara endositoz yoluyla girebildiğini belirledik8. Benzer deneyler, bloklayıcı antikorların ve hatta hipotez edilen diğer kompetitif bağlanma faktörlerinin uygulanmasıyla da gerçekleştirilebilir. Bu eş zamanlı uygulama deneyleri, enjeksiyon aralıkları uzatılarak veya kısaltılarak zamansal olarak da modüle edilebilir; örneğin, bir faktör diğerinden 30 dk önce veya bir faktör 5 dk ile 1 sa önce enjekte edilebilir.
Bu metodoloji kullanılarak deneyler tasarlanırken, öncelikle ilgilenilen proteinin tespit stratejisi olmak üzere birkaç faktör göz önünde bulundurulmalıdır. Burada, iki temsili yaklaşım gösterilmiştir: proteinin doğrudan floresan işaretlemesi (Şekil 3C) ve antikorlar kullanılarak immünohistokimyasal tespit (Şekil 3A), her biri farklı avantajlara ve sınırlamalara sahip (Tablo 1Antikor tabanlı saptama oldukça hassastır ve sinyal amplifikasyonuna olanak tanır; ancak doku fiksasyonu gerektirdiğinden, protein dinamiklerinin canlı görüntülemesi gibi uygulamalar için uygun değildir. Doğrudan floresan işaretleme bu sınırlamayı ortadan kaldırır ancak proteinin kendisinin modifiye edilmesini gerektirir; bu durum proteinin özelliklerini etkileyebileceğinden doğrulanmalıdır. Yaklaşım ne olursa olsun, dikkatli bir doğrulama esastır. Ticari antikorlar yaygın olarak mevcuttur ancak hedef dışı bağlanma veya çapraz reaktivite gösterebilirler, bu da özgünlük testlerini kritik hale getirir. Mümkün olduğunca antikor performansı, antikor doğrulaması için altın standart olmaya devam eden yabani tip ve protein nakavt dokulardaki boyamanın karşılaştırılması gibi uygun kontroller kullanılarak onaylanmalıdır.
Buna karşılık, doğrudan floresan etiketleme, deneysel kullanım öncesinde hem hazırlık hem de doğrulama gerektirir. Bu yaklaşım, antikorlara ihtiyaç duymadan proteinin doğrudan görüntülenmesine olanak tanısa da, floresan etiketin protein yapısını, lokalizasyonunu, etkileşimlerini veya fonksiyonunu değiştirmediğinin onaylanması esastır. Uygun doğrulama işlemi proteine göre değişir ancak Western blot ile beklenen moleküler ağırlığın onaylanmasını, normal hücresel veya hücre altı lokalizasyonun doğrulanmasını veya ko-immünopresipitasyon gibi analizler aracılığıyla bilinen protein-protein etkileşimlerinin korunduğunun değerlendirilmesini içerebilir. Sonuç olarak, hem antikor tabanlı saptama hem de doğrudan protein etiketlemenin kendine özgü avantajları ve sınırlamaları vardır; en uygun yaklaşım, ilgilenilen proteine ve yayınlanmış önerilere19 göre uyarlanmış pilot çalışmalarla ampirik olarak belirlenmelidir.
Bu metodolojinin güvenilir olması için, deneyci tarafından seçilen stereotaksik koordinatların ve enjekte edilen protein konsantrasyonunun önceden ampirik olarak optimize edilmesi ve doğrulanması önemlidir. Koordinat doğrulaması, Fast Green gibi bir boyanın pilot enjeksiyonu ve ardından enjeksiyonu takiben beynin hemen toplanmasıyla gerçekleştirilebilir. Bu işlem, boyanın ilgi bölgesine lokalizasyonunun görsel olarak onaylanmasını sağlayacağı gibi, mümkün olan en doğru enjeksiyon için koordinatların ayarlanmasına da olanak tanıyacaktır. Yazarlar, ilgi bölgeleri için doğru stereotaksik koordinatları belirlemek amacıyla daha önce yayınlanmış çalışmalara başvurulmasını veya Protokol'de açıklandığı üzere, bregma-lambda oranına dayanarak büyük veya küçük farelerde test edilecek koordinatların hesaplanmasını önermektedir.
Enjekte ettiğiniz protein hakkında deneysel sonuçlar çıkarabilmek için, iyi tasarlanmış bir deneyde dikkate alınması ve yer verilmesi gereken bir dizi temel kontrol bulunmaktadır. Mikroglia kaynaklı proteinlerin incelenmesinde doğası gereği bazı zorluklar mevcuttur. aracılığıyla intrakraniyal uygulama. Eğer bir araştırmacı belirli bir beyin bölgesindeki belirli bir proteine verilen yanıtla ilgileniyorsa, cerrahi işlemin kendisi enflamatuar olacaktır ve bulguları karıştırabilecektir. İmmünle ilgili proteinler değerlendirilirken, uygulanması en kolay olanlar, ya plasebo cerrahinin (protein enjeksiyonu hariç tüm adımlar) ya da taşıyıcı kontrol enjeksiyonunun (tüm adımlar uygulanır, ancak protein yerine aynı hacimde sadece protein tampon çözeltisi enjekte edilir) veya her ikisinin birden gerçekleştirildiği cerrahi kontrollerdir. Bunlar, cerrahiye veya doku hasarına bağlı etkiler ile proteinin kendisinden kaynaklanan etkileri birbirinden ayırmaya yardımcı olur. Daha kesin bir yaklaşım, aynı hacim ve konsantrasyonda inaktif veya ilgisiz bir proteinin enjekte edildiği bir kontrol grubunun dahil edilmesi olacaktır. Kontrol proteininin deneysel proteine kıyasla göreceli boyutunun dikkate alınması önemlidir; örneğin C1q çok büyük bir proteindir (~450 kD), bu nedenle sığır serum albümini (~66 kD) gibi yaygın bir kontrol proteini enjekte etmek en uygun yöntem olmayabilir. Bu nedenle, inaktif protein kontrolü olarak ısı ile inaktive edilmiş C1q kullanılmıştır. Toplama öncesindeki istenen zaman aralığında enjekte edilen proteinin yayılımına bağlı olarak bu işlem, deneysel olarak enjekte edilen hemisferin karşıt (kontralateral) hemisferine bu kontrol koşullarından birinin eklenmesiyle, denek içi kontrol olarak gerçekleştirilebilir; bu durum şurada görülmektedir: Temsili Sonuçlar (Şekil 4 ve Şekil 5).
Deneysel tasarımda önemli bir husus doku tespit stratejisidir; çünkü tespitin hem türü hem de süresi, protein görünürlüğünü, doku morfolojisini ve bazı durumlarda protein fonksiyonunu derinden etkileyebilir. Paraformaldehit (PFA) gibi çapraz bağlayıcı tespit ediciler genellikle doku mimarisinin üstün şekilde korunmasını sağlar, ancak aşırı protein çapraz bağlama yoluyla tespite duyarlı epitopların saptanmasını azaltabilir, otoflüoresansı artırabilir ve antijen geri kazanımını gerektirebilir. Buna karşılık, alkol, aseton veya metanol bazlı solüsyonlar gibi çapraz bağlamayan tespit ediciler genellikle tespite duyarlı proteinleri daha iyi korur ancak doku bütünlüğünü bozabilir. Bu ödünleşimler, deneysel hedeflere bağlı olarak; lam üzerinde tespit ile taze dondurulmuş kesitlerin kullanımı, ardından kısa süreli PFA daldırmayı takip eden salin perfüzyonu veya standart perfüzyon tespiti dahil olmak üzere, tespit süresi ve yönteminin optimize edilmesiyle hafifletilebilir. Hiçbir tek tespit stratejisi tüm uygulamalar için optimal olmadığından, araştırmacılar doku koruması ile protein saptaması arasında en iyi dengeyi kurmak için temel deneysel sonlanım noktalarına göre tespit koşullarını seçmeli ve ampirik olarak optimize etmelidir.
Bu protokolün amacı, deneysel sonuçları nicelleştirmek için yöntemler önermekten ziyade protein iletimini standartlaştırmaktır; ancak, çalışma hedeflerine bağlı olarak birkaç farklı yaklaşım faydalı olabilir. Bu örnekte, hücre tipi spesifik protein alımı, hücresel belirteçlere karşı antikorlarla (örneğin nöronlar için NeuN) immünlekelenme yapılarak ve ilgili protein ile kolokalizasyon nicelleştirilerek değerlendirilmiştir (Şekil 5); bununla birlikte, floresan raporcu fare hatları spesifik hücre popülasyonlarını belirlemek için alternatif bir yol sunmaktadır. Bir diğer önemli sonuç, enjekte edilen proteinin biyokimyasal özelliklerinden güçlü bir şekilde etkilenen protein difüzyonudur. Protein yayılımının doğru karakterizasyonu gerektiğinde, intrakraniyal iletimi takip eden belirli zaman noktalarında enjeksiyon dağılımını ve doku difüzyonunu tahmin etmek için, tanımlanmış moleküler ağırlıklardaki dekstranlar gibi inert bir floresan izleyicinin birlikte enjekte edilmesini öneririz. Bu deneyler, Temsili Sonuçlar bölümü için deneysel parametreleri belirlemek amacıyla yazarlar tarafından daha önce gerçekleştirilmiştir8.
Son olarak, sorun giderme aşamasında protein tespitinin ve intrakraniyal iletimin optimizasyonu gerekli olabilir. Yaygın karşılaşılan zorluklardan biri, ilgilenilen proteinden güvenilir bir floresan sinyal elde etmektir. Yukarıda tartışıldığı üzere, fiksasyon stratejisi sinyal kalitesinin temel belirleyicisidir. Yüksek otofloresansa zayıf bir gerçek floresan sinyal eşlik ediyorsa, öncelikle doku fiksasyon süresinin ve/veya derecesinin azaltılması önerilir; çünkü aşırı fiksasyon yaygındır ve hem artan otofloresansa hem de azalan hedef sinyale katkıda bulunabilir. Bu protokol ayrıca, hedef floresansın sinyal-gürültü oranını iyileştirebilen bir otofloresans söndürme çözeltisi içermektedir. Doğru şekilde uygulandığında, enjeksiyon prosedürü minimum doku hasarıyla sonuçlanmalıdır. Enjektör giriş bölgesinde kavitasyon veya lezyon oluşumu gözlemlenmemelidir. Bunlardan herhangi biri meydana gelirse, temiz doku penetrasyonunu sağlamak için cam çekme pipetlerin hazırlanmasının optimize edilmesi gerekebilir. Örneğin, pipet ucunun yeterince sert olduğundan ve beyin parenkimi ile temas ettiğinde bükülmediğinden emin olun ve pürüzsüz girişi kolaylaştıran keskin bir kenar oluşturmak için eğimi gerektiği gibi ayarlayın. Derin beyin bölgelerine yapılan enjeksiyonlar için, enjektörün beyin yüzeyine temas etmeden hedef bölgeye ulaşmasını sağlamak amacıyla çekilmiş pipetin uzunluğunun artırılması da gerekebilir. Enjekte edilen maddeyi bir ventrikül yerine doğrudan beyin parenkimine iletirken; ödemi minimize etmek, enjeksiyon bölgesinde kavitasyonu önlemek ve pipet geri çekilirken enjekte edilen maddenin geri akışını azaltmak için küçük bir enjeksiyon hacmi (<1 µL) önerilir. Ayrıca, enjekte edilen maddenin çevre dokuya difüzyonuna izin vermek için yavaş enjeksiyon yapılması (<500 nL/min) ve enjeksiyon tamamlandıktan sonra pipeti geri çekmeden önce 5–10 dk beklenmesi önerilir. Pipet çıkarılırken enjeksiyon yolu boyunca sıvının geri aktığı gözlemlenirse veya immünohistokimyasal işlemden sonra enjeksiyon yolu boyunca tespit edilirse, enjeksiyon hacmi ve/veya enjeksiyon hızı azaltılmalı ve enjeksiyon sonrası bekleme süresi uzatılmalıdır.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Teşekkürler
Bu çalışma; Ulusal Alzheimer Koordinasyon Merkezi (NACC; NSH), Alzheimer Derneği (NSH) ve Duke Beyin Bilimleri Enstitüsü (DIBS) Germinator Ödülü (JD) tarafından sağlanan fonlarla desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| %0,9'luk Salin (farmasötik derece) | Cytiva | Z1376 | |
| 30 mL şırıngalar | Becton, Dickinson and Company (BD) | 302832 | |
| %70 etanol | Koptec | UN1170 | |
| Alexa Fluo 594 C5 Maleimid | Invitrogen | A10256 | |
| Anestezi vaporizatörü | Gerçek Dünya Verileri (RWD) | TAIJI-IE | |
| Boncuk sterilizatör | VWR | 75999-324 | |
| BSA | Genessee Scientific | 25-529 | |
| Kelebek iğne - Vacutainer Safety-Lok | Becton, Dickinson and Company (BD) | 367281 | |
| Lameller - 50 mm No. 1 | Avantor (VWR) | 48393-081 | |
| Dijital kemirgen stereotaksik cihazı | RWD (Gerçek Dünya Verileri) | 68803 | |
| Tek kullanımlık dondurma kalıpları | Elektron Mikroskobu Bilimleri | 70182 | yetişkin fare beyni sagital kesitleri için 22 mm x 22 mm |
| Diseksiyon mikroskobu | Leica | MZ FLIII | |
| Gömme ortamı - Tissue-Tek OCT | Sakura | 4583 | |
| Göz kayganlaştırıcısı | Optixcare | OPX-4242 | |
| Cam pipet çekici | Sutter Instrument Co. | Model P-30 | 1,14 MM, 3,5 kullanıyoruz" enjektörümüz için boyut |
| Cam pipetler | World Precision Instruments | 504949 | |
| Keçi anti-Tavşan AF594 sekonder antikoru | Invitrogen | A-11012 | |
| Keçi anti sıçan AF488 sekonder | Invitrogen | A-11006 | |
| Tüy dökücü krem | Nair | 42016527 | |
| Isıtmalı tabla - Rodent Warmer X1 | Stoelting | 53800M | |
| Matkap uçlu yüksek hızlı rotasyonel mikromotor (matkap) | Stoelting | 51449 | |
| İzofluran | Dechra | Isospire | |
| Mikroenjektör ve kontrol ünitesi | WPI | NANOLİTRE2020 | |
| Mikroskop lamları | Prömiyer | 8348 | |
| Hafif mineral yağ | Fisher Scientific Eğitim | S25439 | |
| DAPI içeren montaj medyumu | Sigma-Aldrich | F6057 | |
| Oje | Elektron Mikroskobisi Bilimleri | 72180 | |
| Doğal fare kompleman C1q proteini | Creative Biolabs | CTP-463 | Diğer üreticilerin ürünleri, normal beyin C1q dinamiğini inhibe eden moleküler kontaminantlar içerebilir. |
| Pap kalem - ImmEdge Pen | Vector Laboratories | H-4000 | |
| Paraformaldehit - %16 | Elektron Mikroskobisi Bilimleri | 15710 | %4'e seyreltin |
| Fosfat tamponlu tuzlu su (PBS) | Sigma-Aldrich | P3813 | |
| Povidon-İyot Çözeltisi, %10 (a/h) | Ricca | 3955-16 | |
| Tavşan anti C1q primer antikoru | Abcam | ab182451 | |
| Sıçan anti NeuN (RBFOX3) primer antikoru | Biolegend | 608451 | |
| Saponin | Sigma-Aldrich | 47036 | |
| Neşter uçları - No. 10 | VWR | 76457-442 | |
| Buhar indikatör şeritleri | Steris | 801010 | |
| Puritan Steril Pamuk Uçlu Uygulayıcılar | Püriten | 25-806 1WC | |
| Sakkaroz | Sigma-Aldrich | 84097 | |
| Cerrahi havlular | McKesson | 16-6006-B | |
| Doku yapıştırıcısı - Vetbond | 3M | 1469SB | |
| Tris tamponlu salin | Sigma-Aldrich | T5941, S7653 | |
| TrueBlack | BIOTIUM | 23007 |
Kaynaklar
- Medawar PB. Immunity to homologous grafted skin; the fate of skin homografts transplanted to the brain, to subcutaneous tissue, and to the anterior chamber of the eye. Br J Exp Pathol. 1948;29(1):58-69.
- Medawar PB. Immunological tolerance. Nature. 1961;189:14-17.
- Guo X, et al. Neuro-immune crosstalk: molecular mechanisms, biological functions, diseases, and therapeutic targets. MedComm (2020). 2026;7(2):e70497.
- Castellani G, Croese T, Peralta Ramos JM, Schwartz M. Transforming the understanding of brain immunity. Science. 2023;380(6640):eabo7649.
- Di Pietro AA, et al. Microglia in systemic neuroimmune communication: functions beyond phagocytosis. Trends Immunol. 2026;47(6):495-510.
- Zhou L, Wang Y, Xu Y, Zhang Y, Zhu C. A comprehensive review of AAV-mediated strategies targeting microglia for therapeutic intervention of neurodegenerative diseases. J Neuroinflammation. 2024;21(1):232.
- Yue W, Shen J. Local delivery strategies for peptides and proteins into the CNS: status quo, challenges, and future perspectives. Pharmaceuticals (Basel). 2023;16(6):810.
- Scott-Hewitt N, et al. Microglial-derived C1q integrates into neuronal ribonucleoprotein complexes and impacts protein homeostasis in the aging brain. Cell. 2024;187(16):4193-4212.e4124.
- Fonseca MI, et al. Cell-specific deletion of C1qa identifies microglia as the dominant source of C1q in mouse brain. J Neuroinflammation. 2017;14(1):48.
- Stevens B, et al. The classical complement cascade mediates CNS synapse elimination. Cell. 2007;131(6):1164-78.
- Schafer DP, et al. Microglia sculpt postnatal neural circuits in an activity and complement-dependent manner. Neuron. 2012;74(4):691-705.
- Hong S, et al. Complement and microglia mediate early synapse loss in Alzheimer mouse models. Science. 2016;352(6286):712-6.
- Wang C, et al. Microglia mediate forgetting via complement-dependent synaptic elimination. Science. 2020;367(6478):688-94.
- Stevens B, Johnson MB. The complement cascade repurposed in the brain. Nat Rev Immunol. 2021;21(10):624-5.
- Stephan AH, et al. A dramatic increase of C1q protein in the CNS during normal aging. J Neurosci. 2013;33(33):13460-74.
- Datta D, et al. Classical complement cascade initiating C1q protein within neurons in the aged rhesus macaque dorsolateral prefrontal cortex. J Neuroinflammation. 2020;17(1):8.
- Ling GS, et al. C1q restrains autoimmunity and viral infection by regulating CD8. Science. 2018;360(6388):558-63.
- Zubler RH, Lange G, Lambert PH, Miescher PA. Detection of immune complexes in unheated sera by modified 125I-C1q binding test: effect of heating on the binding of C1q by immune complexes and application of the test to systemic lupus erythematosus. J Immunol. 1976;116(1):232-5.
- Obermaier C, Griebel A, Westermeier R. Principles of protein labeling techniques. Methods Mol Biol. 2015;1295:153-65.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında