Yeni araştırmacılar için hazırlanmış, solucanların erken gelişiminin görüntülenmesine yönelik teknik olarak erişilebilir ve maliyet etkin bir protokol tanımlıyoruz.
Yöntem makalesi
Solucan Erken Gelişiminin Görüntülenmesi: Yeni Araştırmacılar İçin Pratik Bir Kılavuz
* These authors contributed equally
Bu makalede
Özet
Özet
2025 yılında 25. Uluslararası Solucan Toplantısı'nda sunulan Caenorhabditis Genetics Center (CGC) suş dağılım kaydına göre, 80 ülkedeki yaklaşık 8.000 laboratuvar araştırmalarında bu hayvanları kullanmaktadır. Özellikle sınırlı deneyime veya kaynağa sahip laboratuvarlarda, solucan davranışları hakkında birinci elden veri üretmek için sürdürülebilir bir kültür ve bakım platformu kurmak esastır. Burada, Caenorhabditis elegans örneğini kullanarak, yeni araştırmacıların temel solucan tutma ve görüntüleme iş akışlarını oluşturmaları için pratik bir protokol sunuyoruz. Daha sonra, mikroskobik görüntüleme için seçilen erken gelişim aşamalarında normal ve bozulmuş C. elegans örneklerinin toplanma prosedürlerini açıklıyoruz. Görüntüleme hedefleri arasında germ hücresi gelişimi (mitoz ve mayoz), fertilizasyon öncesi oositler, oosit-sperm pronükleer migrasyonu ve füzyonu, psödoklevaj ve organizmayı oluşturan embriyonik gelişim (mitoz) yer almaktadır. Embriyonik ve tüm organizma görüntüleme basit olsa da, hassas germ hattı ve embriyo diseksiyonu, hızlı örnek toplama, montaj, timelapse görüntüleme ve temel görüntü analizini kolaylaştırmak için geliştirilmiş kılavuzlar ve teknik ipuçları sağlıyoruz.
Giriş
Nematod solucanlar, biyomedikal araştırmalardaki en güçlü model organizmalar arasındadır1,2yüksek derecede tekrarlanabilir gelişimsel programları ve gen perturbasyonları aracılığıyla ortaya çıkan çeşitlilikleri nedeniyle3,4,5,6 ve ilgili türler7,8,9,101960'larda Sydney Brenner tarafından tanıtılmasından beri, Caenorhabditis elegans (C. elegansküçük boyutu, optik şeffaflığı, hızlı üç günlük yaşam döngüsü, tamamen çözümlenmiş hücre soy hattı, dizilenmiş ve açıklanmış genomu ile gen fonksiyonlarını kontrol etmeye yönelik gelişmiş genetik araç kitleri ile öne çıkan temsili bir model olarak ortaya çıkmıştır11,12,13,14,15,16Bu araştırmaların merkezinde, özellikle germ hattı ve embriyoda —yani mayoz ve mitozdan tam bir organizmanın oluşumuna kadar uzanan gelişim sürekliliğinde— dinamik biyolojik olayların mikroskopi aracılığıyla görselleştirilebilme yeteneği yer almaktadır.17Bu süreç boyunca, hızlı meiyotik ve ardışık mitotik bölünmeler ile çok hücreli yeniden organizasyon, dikkat çekici bir uzaysal ve zamansal hassasiyetle ilerler.17.
Genellikle in vitro olarak izlenen embriyoyla karşılaştırıldığında, in vivo germ hattı, özellikle yeni araştırmacılar için, tek bir doku içinde hem mayozun hem de mitozun incelenmesi için ideal bir sistemdir; çünkü mekansal olarak ayrılmış mayotik ve mitotik bölgeler, bu farklı hücre bölünme modlarının eş zamanlı olarak gözlemlenmesine olanak tanır (Şekil 1)18. Bir sinsityum olarak organize olan C. elegans germ hattında, germ hücreleri ortak bir sitoplazmik çekirdek olan rakhis aracılığıyla birbirine bağlıdır18 (Şekil 1). Germ hücresi proliferasyonu, distal gonad kolunda, primordial germ hücrelerinin (PGC) eksik ve asimetrik bölünmeleri aracılığıyla mitoz yoluyla gerçekleşir. Geç larva-4 (L4) evresi sırasında, sinsityal pakiten spermatositler kademeli olarak rakhisten ayrılır ve proksimal gonad kolunda mayoza girerler19. Bu durum, immobilize edilmiş/anestezi uygulanmış hayvanlarda doğrudan in vivo veya diseke edilmiş primer spermatositlerde in vitro olarak görüntülenebilir20,21.
Germ hattındaki ve embriyodaki biyolojik fenomenler olağanüstü derecede zengin olup çeşitli bilimsel araştırma alanlarında geniş bir geçerliliğe sahiptir. Mayotik olgunlaşmanın ardından, germ hücresi kaynaklı oositler, sperm tarafından döllenmek üzere spermatekaya girerek embriyogenezi başlatır22,23. Gelişimsel süreçlerindeki olağanüstü sağlamlık, C. elegans embriyolarını; hücre polaritesi, hücre bölünmesi, hücre döngüsü ve hücre hareketinin moleküler mekanizmalarını araştırmak için mükemmel bir model haline getirir24,25. Yeni döllenmiş embriyoları açığa çıkarmak için genç yetişkin solucanlar diseke edilebilir; ardından bu embriyolar, oosit-sperm pronükleer migrasyonu ve füzyonu, psödokleavage, asimetrik hücre bölünmesi, gastrülasyon, organogenez ve benzerlerini içeren ancak bunlarla sınırlı olmayan temel gelişimsel dönüm noktalarının timelapse görüntülemesi için seçilir.
Germ hattındaki ve embriyodaki tam veya kısmi yapılara optik erişim prensipte her zaman mümkün olsa da, yüksek kaliteli ve yayınlanabilir düzeyde mikroskopi, yeni başlayanlar için oldukça zorlayıcı olmaya devam etmektedir. Literatürdeki “standart” yazılı protokoller, karmaşık prosedürleri sıklıkla tekniğin nüanslı “hissiyatını” yakalayamayan seyrek ve belirsiz tanımlamalara indirgemektedir. Buna örnek olarak, kullanılan anesteziğin tam miktarı, diseksiyon sırasında gonada zarar vermemek için gereken nazik işlem ve mikroskopi için hassas odak düzlemi seçimi gösterilebilir. Sonuç olarak, deneyimsiz araştırmacılar, tutarlı ve tatmin edici görüntüler elde etmeden önce defalarca mentorluğa, uygulama seanslarına ve kapsamlı sorun giderme süreçlerine ihtiyaç duyarak rutin olarak aylar süren yıpratıcı deneme-yanılma süreçleriyle karşılaşabilmektedir. Bu verimsiz bilgi aktarımı, araştırma ilerlemesini geciktirmekte ve laboratuvarlar arası veri yorumlamasını tehlikeye atabilecek istenmeyen teknik değişkenliklere yol açmaktadır.
Örneğin, germ hattında, gonadın anatomik karmaşıklığı ve diğer dokulardan (örneğin, bağırsak) kaynaklanan engeller, hücre morfolojisinin veya bölünme dinamiklerinin in vivo gözlemlenmesini zorlaştırmaktadır. Dahası, germ hattı, hassas tübüler yapısı ve montaj basıncına karşı aşırı duyarlılığı ile ek zorluklar teşkil eder. Bu nedenle, sadece genel germ hattı ve embriyo gözlemleri için değil, aynı zamanda detaylı hücre çözünürlüklü gözlemler için de in vitro görüntüleme tercih edilir. Örneğin, gonaddan disseke edilen tekil proksimal primer spermatositler, dört haploid spermatid haline gelmek için iki ardışık meyoz evresini tamamlayabilir ve doku yapısından kaynaklanan gölgelerin olmaması, daha yüksek kaliteli görüntülerin yakalanmasını kolaylaştırır. Bu gözlemler diğer dokulara veya tüm vücuda genişletilebilir26,27,28,29,30,31,32. Kullanışlı bir şekilde, her işlem 1 h içinde tamamlanabilmekte ve bu durum timelapse görüntülemeyi kolaylaştırmaktadır.
Burada, germ hücresi gelişiminden embriyonik gelişime kadar seçilmiş gelişim aşamalarını kapsayan, yalnızca görüntüleme prosedürlerini değil, solucan görüntülemesine yeni başlayan araştırmacılar için teknik engelleri azaltmak adına hazırlık adımlarını da (örneğin, solucan diseksiyonu) içeren pratik, adım adım bir timelapse görüntüleme protokolü sunuyoruz33. Protokolümüz, çok saatlik kayıtlar boyunca canlılığı koruyan optimize edilmiş montaj prosedürlerinden, sinyal-gürültü oranını fototoksisite/fotobleaching minimizasyonu ile dengeleyen mikroskop parametre konfigürasyonuna ve temel görüntü elde etme işlemlerine kadar, hem germ hattı hem de embriyo için mikroskobik görüntülemenin gerçek zamanlı görsel gösterimini vurgulamaktadır.
Protokol
NOT: C. elegans popülasyonlarının başarılı bir şekilde uzun süreli bakımı, sonraki deneysel çalışmaların temelini oluşturur ve yüksek kaliteli nematod büyüme ortamının (NGM) tutarlı üretimini, bakteri besin kaynaklarının güvenilir şekilde çoğaltılmasını, suş büyümesi ve üremesi için uygun çevresel koşulları ve kontaminasyon nedeniyle kültür kaybını önleyecek etkili stratejileri gerektirir.
1. Solucan kültürü ve bakımı
NOT: Burada yalnızca bazı tavsiyeler sunmaktayız; ayrıntılı prosedürler Wormbook34 içerisinde bulunabilir. Tartım ve hazırlama adımlarını azaltmak için önceden karıştırılmış NGM tozunu kullanın.
- Tüm hayvanları, besin ekilmiş NGM agar üzerinde kültüre edin E. coli OP50'de 20 °C yabanıl tip (WT) ve 16 °C veya 25 °C sıcaklığa duyarlı mutantlar (ts mutantlar) için.
NOT: Birinci sınıf öğrenciler, CGC mutant suşlarını teslim aldıklarında kültür sıcaklığını doğrulamalıdır.
NOT: WT hayvanlar yüksek sıcaklıklarda daha hızlı büyür; ts mutantları şu sıcaklıklarda embriyo üretebilir: 16 °C (izin verici sıcaklık) ancak şu sıcaklıkta değil 25 °C (belirli bir gen veya proteinde fonksiyon kaybı etkileri gösterdikleri kısıtlayıcı sıcaklık)35,36,37,38Suşlar ve besiyerleri CGC'den [https://cgc.umn.edu] satın alınabilir veya yakın laboratuvarlardan hediye olarak temin edilebilir. - Aç bırakma işlemi öncesinde hayvanları yeni plakalara aktarın (belirgin şekilde daha az sayıda... Escherichia coli (E. coli) (mikroskop altında gözlemlenen OP50), sonraki deneyler için sağlıklı kalmalarını sağlamak amacıyla (~2–3 gün).
- Hayvanları, -'de dondurma tamponu (son konsantrasyonu %15'e tamamlanmış gliserol katkılı S tamponu) içerisinde saklayın80 °C gece boyunca bekletin ve uzun süreli saklama için bir dondurma kutusuna veya sıvı azota aktarın34.
NOT: Tüm kriyotüpleri dondurmadan önce yağ bazlı, su geçirmez kalıcı kalemlerle etiketleyin. Su bazlı mürekkepler, ultra düşük sıcaklıktaki saklama koşullarıyla uyumsuzdur.
2. Agaroz ped hazırlama
- 3 g agarozu tartın ve 250 mL'lik bir konik erlene aktarın. 100 mL M9 tamponu ekleyin, iyice karıştırın ve agaroz tamamen çözünene kadar bir mikrodalga fırında 2–3 dk ısıtın (bundan sonra agaroz tamponu olarak adlandırılacaktır).
NOT: Tampon buharlaşmasını önlemek ve ozmotik konsantrasyon hatalarını en aza indirmek için konik ağzını yağlı kağıtla kapatın. Toplam hacim, deney gereksinimlerine göre ayarlanabilir. - İyice karıştırılmış agaroz tamponunu, oda sıcaklığında 1 aya kadar saklanabilen 1,5 mL'lik bir santrifüj tüpüne aktarın. Saklanan agarozu 90–100 °C'ye ayarlanmış bir ısıtıcı blokta eritin (taze hazırlanmış agaroz kullanılıyorsa bu adımı atlayın).
- Açıklığı genişletmek ve katılaşma kaynaklı tıkanmayı önlemek için 200 µL'lik bir pipet ucunun ucunu kesin ve eritilmiş agaroz tamponundan bir damlayı lam üzerine (boyut: 75 x 25 mm; kalınlık: 0,9–1,10 mm; tip: soda kireç camı) yerleştirin.
- Damlanın üzerini hemen başka bir lamla kapatın. Lamel kenarlarına (boyut: 22 x 22 mm; kalınlık: 0,25 mm) ek agaroz tamponu uygulayın ve hava kabarcığı kalmadığından emin olarak agarı, her bir lameli tamamen çevreleyen ince, yuvarlak bir daire şeklinde nazikçe bastırın.
NOT: Bu işlem, hayvanın sabitlenmesi için sızdırmaz bir mikrooda oluşturur ve dehidrasyonu önler. Yüksek kapasiteli deneyler için birden fazla lam paralel olarak işlenebilir. - Kullanmadan önce agarın tamamen katılaşması için en az 3 dk soğumaya bırakın.
NOT: Hayvan stres altına girmesin diye, agaroz pedi katılaşır katılaşmaz görüntüleme için kullanın. Katı agar merkezden su çekecek ve bu durum sonunda hayvanın ölümüne yol açacaktır.
3. Hermafrodit veya erkek solucanlarda spermatogenezin In vivo gözlemi (Şekil 1 ve Ek Video S1)
- Bölüm 2'de yukarıda açıklandığı şekilde bir agaroz ped hazırlayın.
- 10–20 NMY-2::GFP işaretli hayvanı20 (geç L4 evresi), bir lamel üzerindeki M9 tamponu ile seyreltilmiş 0.5% tetramisol hidroklorürün 5–10 µL'sine hızlıca aktarın.
NOT: Hayvan hareketlerini ve dehidrasyonu önlemek için çok fazla veya çok az tampon eklemekten kaçının. Görüntülemeyi engelleyebilecek E. coli'lerin solucanla birlikte istenmeden aktarılmasını önlemek için, bakteriyel çim sınırından veya dışına sürünmüş solucanları seçin (E. coli kümesi, mikroskop altında bulanık ve yarı saydam bölge olarak gözlemlenebilir). - Hayvanlar tamamen anestezi olana kadar 1 dk inkübe edin.
- Agaroz pedi alt lam üzerinde bırakarak, üst lamı nazikçe kaldırın.
- Agaroz pedin bulunduğu lamı ters çevirin. Hava kabarcığı oluşumunu önlemek için pedi, tampon içindeki solucanlara nazikçe dokundurun ve indirin. Lamı, lamel yukarı gelecek şekilde çevirin.
NOT: Solucan vücuduna zarar verebilecek hızlı lamel hareketlerinden kaçının. - 200 µL'lik bir pipet ucu kullanarak, ısıtılmış sıvı vazelin (katı agar ile birlikte önceden ısıtılmış) uygulayın, pipet ucunu lamel sınırları boyunca hızlıca hareket ettirin ve vazelinin soğuyarak lameli lama sabitlemesini sağlayın.
- Germ hücresi gelişimini görüntülemek için lamı mikroskop tablasına yerleştirin.
- Tekil görüntüler için, floresan sinyalini optimize etmek adına (farklı suşlardaki floresan ekspresyon gücüne göre) lazer gücünü ve pozlama süresini artırın; daha iyi floresan görselleştirme için bu değerler gerektiğinde artırılabilir .
- Timelapse/Z-stack görüntülemeler için, fototoksisiteyi/fotobleaching'i en aza indirmek amacıyla daha düşük eksitasyon gücü ve daha kısa pozlama süresi kullanın.
NOT: Amaç, solucan büyümesi üzerinde minimum olumsuz etki ile uzamsal ve zamansal görüntüleme verileri elde etmektir .
4. In vivo PGC bölünmelerinin gözlemlenmesi (Şekil 1 ve Ek Video S1)
- Bölüm 2'de yukarıda açıklandığı gibi bir agaroz ped hazırlayın.
- 10 adet NMY-2::GFP işaretli hayvanı39,40 (geç L1'den genç yetişkin evreye kadar), bir lamel üzerindeki M9 tamponu ile seyreltilmiş 0.5% tetramisol hidroklorürün 5–10 µL'sine aktarın.
- Hayvanlar tamamen immobilize olana kadar 1 dk inkübe edin.
- Üst lameli kaldırarak agaroz pedi alt lamel üzerinde bırakın.
- Agaroz pedin bulunduğu lameli ters çevirin. Hava kabarcıklarını önlemek için tampon içindeki solucanların bulunduğu pede nazikçe dokunun. Lameli, lamel yukarı bakacak şekilde tekrar çevirin.
- Adım 3.6'da açıklandığı gibi, 200 µL pipet ucu kullanarak lamelin kenarlarını vazelin ile mühürleyin.
- Görüntüleme için lameli mikroskop tablasına aktarın.
5. Erkek spermatogenezinin in vitro gözlemi için germ hattının diseksiyonu (Ek Şekil S1 ve Ek Video S2)
NOT: Şırınga boyutu kişisel tercihe göre ayarlanabilir. Erkekler tek bir gonad içeren tam ve tek bir germ hattına sahipken, hermafroditler iki gonada sahiptir (her ikisi de geç L4 aşamasından genç yetişkin aşamasına kadar sperm üretir ve daha sonraki aşamalarda oosit üretir)41.
- Taze in vitro kültür tamponu (%15 FBS içeren Leibovitz L-15 medyumu) hazırlayın.
NOT: Tampon, 4 °C'lik bir buzdolabında bir haftadan fazla saklanmamalıdır. Serum, -20 °C'de uzun süreli saklama için farklı tüplere bölünebilir. - Yaklaşık 10 adet N2 veya floresan işaretli (NMY-2::GFP; mCherry::Histone) erkek solucanı (geç L4 evresi), 500 µL kültür tamponu içeren 1,5 mL'lik bir santrifüj tüpüne yerleştirin.
- Tüpü 1.000 × g'de 2 dakika boyunca santrifüjleyin. Üstteki 400 µL tamponu nazikçe uzaklaştırın.
- 400 µL kültür tamponu ekleyin ve 5.2–5.3 arasındaki adımları tekrarlayın.
- Kalan tamponu (hayvanları içeren) bir lamel üzerine aktarın. Nematodları nikotinik asetilkolin reseptör agonizması41 ve lokal anestezik aktivite42 yoluyla immobilize etmek için uygun hacimde tetramizol hidroklorür (final konsantrasyonu %0,1) veya levamizol (final konsantrasyonu 0,1 mM) ekleyin. Solucanlar hareket etmeyi bırakana kadar lameli nazikçe dairesel hareketlerle sallayın.
NOT: Maliyetleri düşürmek için, kalıntıları veya E. coli'yi uzaklaştırmak üzere ilk yıkamalarda M9 tamponu kullanılabilir. Kültür tamponunu yalnızca son yıkama sırasında veya lam hazırlığından önce ekleyin. Özel gereksinimler için süreci hızlandırmak amacıyla veya tampon çok temizse 5.2–5.3 arasındaki adımlar atlanabilir. - Şırıngalara iki adet 28 G iğne takın ve her bir elinizde bir tane tutun. Lameli diseksiyon mikroskobunun altına yerleştirin, iğneleri bir solucanın üzerinde 30–45° açıyla konumlandırın. Gonadal dokuyu serbest bırakmak için proksimal gonad kolunun yakınına bir insizyon yapın. Tüm hayvanlar için işlemi tekrarlayın.
NOT: Bu işlem vücut kalıntılarının salınmasına neden olacaktır. Yeni başlayanlar için daha fazla pratik yapılması önerilir. Paralitik tamponlardaki maksimum tamamlanmış diseksiyon süresi <5 dakika sürebilir. Zamanlamayı deneysel hedeflere göre ayarlayın. - Lameli sallayın ve kalıntıları toplayın. Büyük kalıntıları bir pipetle nazikçe aspire edin ve küçük primer spermatositlerin lamel üzerinde kaldığından emin olarak mümkün olduğunca az tampon bırakın.
NOT: Lamel üzerinde çok fazla tampon bırakmaktan kaçının; fazlalık, montaj sırasında harekete neden olur. - Temiz bir lam alın ve diseke edilmiş primer spermatositlerin bulunduğu lameli nazikçe örtün. Lamelin kenarlarını, adım 3.6'da olduğu gibi ısıtılmış sıvı vazelinle sızdırmaz hale getirin.
NOT: Spermatositlerin mekanik olarak bozulmasını önlemek için mühürlemeden önce lamelin dört köşesine az miktarda sıvı vazelin uygulayın. - Görüntüleme için mikroskoba aktarın.
NOT: Agaroz pedler kullanmaktan kaçının. Sıvı medyum daha şeffaf bir arka plan sağlayarak primer spermatositlerin ayırt edilmesi için üstün optik netlik sunar.
6. Solucanların diseksiyonu ve in vitro floresans altında döllenme ve embriyogenezin gözlemlenmesi (Ek Şekil S2, Ek Şekil S3, Ek Video S3, ve Ek Video S4) ve parlak alan (Şekil 2 ve Ek Video S5)
NOT: Erken evre embriyolar, spermatheca'nın yakınında, eğimli açıklıkları zıt yönlere bakacak şekilde iki 28 G iğnenin çaprazlanmasıyla elde edildi . Sıvının buharlaşmasını önlemek için hazne mühürlendi ve derhal mikroskoba aktarıldı.
- Lam ve agaroz pedin embriyolar üzerinde oluşturduğu basınç etkisini ortadan kaldırmak için, bir matkap kullanarak 35 mm'lik bir Petri kabının merkezine 10 mm'lik bir delik açın. Ters konfokal mikroskopi için yeniden kullanılabilir bir hazne oluşturmak amacıyla alt kısmı 22 mm'lik bir mikroskop lamel ile sızdırmaz hale getirin.
- Hazneye yaklaşık 30 µL M9 tamponu ekleyin.
NOT: Bu hacim, tur başına 4 saatlik timelapse görüntüleme için yeterlidir. Tampon hacmi, oosit-sperm pronükleer migrasyonu ve füzyonundan, embriyonun yumurtadan çıkmasından önceki kas seğirmelerine kadar kesintisiz görüntülemeye olanak tanır. - Hermafroditleri seçin. Görüntüleme haznesindeki M9 tamponuna yaklaşık 20 genç yetişkin hayvan aktarın.
NOT: Erkekler yalnızca sperm üretir, embriyo üretmezler. - Daha fazla erken evre embriyo salınımı sağlamak için bir şırınga iğnesiyle spermateka bölgesine iki kez transvers kesi yapın. Hayvan gövdesini uzaklaştırmak için bir kirpik cımbızı kullanın.
NOT: Pratikte, platin cımbız sıvı içindeki gövde artıklarını temizlemek için çok serttir. Kalıntıları bir çatal gibi temizlemek için standart gerçek kirpik cımbızından daha iyi işlev gören (çok uçlu) yapay kirpik cımbızını öneriyoruz. - Sıvı buharlaşmasını önlemek için Petri kabını kapağıyla kapatın.
7. Mikroskopi altında zaman ayarlı (timelapse) görüntüleme
- Lamı/hazneyi mikroskoba (örneğin, 60×/1.4 NA objektif ve bir EMCCD kamera ile donatılmış bir ters dönen disk konfokal mikroskop) en düşük büyütme (10×) alanında yerleştirin ve istenen evredeki hayvanları, primer spermatositleri veya yeni döllenmiş embriyoları arayın.
- Floresan olmayan solucanlar için, erken embriyoların gelişim evresini hücre çekirdeğinin konumu, füzyon durumu ve bölünme oluğunun morfolojisi aracılığıyla belirleyin (Şekil 2 ve Ek Video S5).
- In vitro diseke edilmiş primer spermatositler için, raksisten ayrılmış ve tampon içerisinde yuvarlak şekilde dağılmış, bölünme hazırlığında olan hücreleri arayın (Ek Şekil S1 ve Ek Video S2).
- Floresan solucanlar için, evreleri protein dağılımına ve hücre morfolojisine göre tanımlayın.
NOT: Floresan saptaması, GFP için 488 nm uyarım hattı ile 525–550 nm emisyon filtresi ve RFP/mCherry için 561 nm uyarım hattı ile 607–636 nm emisyon filtresi kullanılarak yapılmıştır.
- Bu hücreleri veya embriyoları bulun ve daha yüksek bir büyütmeye (63× veya 100×) geçiş yapın.
NOT: Hücrelerin ve embriyoların hazırlanma ve görüntüleme prensipleri aynı olduğundan, görselleştirilmiş deney eğitiminde hem parlak alan hem de floresan kanalları kullanılarak diseke edilmiş embriyolar örneği gösterilmektedir. - Mikroskop görüntüleme yazılımını kullanarak, Z katmanı sayısına ve araştırma gereksinimlerine bağlı olarak 1 s kadar düşük bir tarama aralığıyla Z-stack (tipik olarak ≤1 µm aralıkla) video kaydına veya anlık görüntü alımına başlayın.
NOT: Fotobleaching/fototoksisiteye duyarlı floresan suşlar için, uzun süreli görüntüleme sırasında fotobleaching/fototoksisiteyi azaltmak amacıyla lazer gücünü düşürün ve pozlama süresini kısaltın. - Görüntü çıktısı için tüm görüntüleri .tiff formatında kaydedin ve orijinal görüntüleme bilgilerini saklayın.
8. Görüntü analizi
NOT: Bireysel .tiff görüntüleri veya zaman ayarlı (timelapse) yığınlar, mikroskoba özgü yazılımlar veya biyolojik görüntü analizi için açık kaynaklı bir platform olan Fiji/ImageJ [https://imagej.net/software/fiji]43 gibi genel analiz yazılımları kullanılarak döndürülebilir, kırpılabilir, etiketlenebilir, ölçülebilir ve işlenebilir.
- Elde edilen görüntüleri Fiji/ImageJ programında açın. Münferit floresan puncta veya yapıların floresan sinyal yoğunluğunu ve dağılımını kontrol edin. Kanalları, Z katmanlarını ve zaman noktalarını tek bir tiff görüntüsünde ayırmak için Image | Adjust | Brightness/Contrast ve Image | Hyperstacks | Stack to Hyperstack seçeneklerini seçin. Sergileme için renk dengesini optimize etmek üzere Image | Color | Channels Tool seçeneğini belirleyin.
- Sol tarafa bakan baş ile solucanın yatay olarak konumlandırılması için her bir görüntüyü döndürmek üzere Image | Transform | Rotate komutunu kullanın. Gerekirse, gereksiz boş bölgeleri kaldırmak için Image | Crop komutunu kullanın.
- Yeterli sinyale sahip temsili karelerden bir Z-projeksiyonu oluşturmak için Image | Stacks | Z Project komutunu kullanın.
NOT: Optimal görselleştirme için, yüksek kontrastlı karelerin birlikte projekte edilmesi önerilir. Ancak, farklı gruplar arasındaki aynı spesifik doku veya organeller içindeki göreli farkları karşılaştırmak için, sinyal zayıf olsa bile tam bilgi içeren birkaç kare birlikte projekte edilebilir. - Projekte edilen görüntüleri sonraki analizler için kaydetmek üzere File | Save As | Tiff komutunu kullanın.
- Kullanılan konfokal mikroskoba bağlı olarak, piksellerin mikrometreye (µm) dönüştürülmesi için görüntü ölçeğini kalibre edin. Kalibrasyondan sonra, bir ölçek çubuğu eklemek için Analyze | Tools | Scale Bar komutunu kullanın.
NOT: Yukarıdaki görüntü işleme işlemleri görselleştirme ve şekil hazırlama ile sınırlıdır. Toplu işlem veya otomatik ölçümler gerektiğinde Fiji/ImageJ veya CellProfiler44 ve Python tabanlı analiz boru hatları45 gibi diğer açık kaynaklı araçları kullanın.
Sonuçlar
Fenotipik analiz için C. elegans'ın hücresel düzeyde görüntülenmesi geleneksel olarak optik ekipmanlara yönelik önemli yatırımlar gerektirmektedir; ancak modern tüketici elektroniği ve yenilikçi adaptör sistemleri artık dikkat çekici derecede düşük maliyetle tatmin edici görüntüleme yetenekleri sunmaktadır. Hermafroditlerin gonad yapısını konfokal mikroskopi veya diğer kolayca erişilebilir araçlarla in vivo görüntülemek için, NMY-2::GFP'nin U şeklindeki gonadın genel yapısını, rakhisi ve primer spermatositlerin kortikal bölgesini işaretlediği, mCherry::Histone'un ise çekirdek morfolojisini ve gelişim aşamasını gösterdiği iki floresan etikete sahip bir suş kullanıyoruz (Şekil 1 ve Ek Video S1)20. Bu iki protein farklı çalışmalarda yaygın olarak kullanılmaktadır46,47,48. 3D yapısal bilgilerin çoğunu yakalamak için, solucan gonadının altından üstüne kadar 1 µm aralıklarla tüm Z-yığınını elde ettik. Kromozomun kompakt kütlesine ve ekvatoryal bölgede NMY-2'nin zayıf birikimine dayanarak, en proksimal primer spermatositlerin karyozom aşamasında olduğu görülmektedir; bu durum, bu hücrelerin ilk bölünmelerine başladıklarını göstermektedir (Şekil 1 ve Ek Video S1). Ayrıca, PGC'lerin mitotik bölünmeleri gonadın distal bölgesinde meydana gelir ve bu protokol ile yakalanabilir.
Spermatogenezin in vitro gözlemi için öncelikle kültür tamponu hazırlarız. Solucanlar disseke edilir ve germ hattı spermatositleri tampona salınır. Nükleer morfoloji (nükleer zar yıkımının başlangıcı) veya tüm hücre morfolojisi ile tanımlanan, ilk bölünmelerine hazırlanan primer spermatositlerin hızla tespit edilmesi kritik önem taşır. Floresan suşlar, doğru gelişim aşamasının belirlenmesini kolaylaştırır. Fototoksisite/fotobeyazlama ile yakalama verimliliği arasındaki dengeyi sağlamak için görüntüler 30 s intervals aralıklarla alınır. (Ek Şekil S1 ve Ek Video S2).
Erken embriyogenez hakkında daha fazla bilgi edinmek için öncelikle, paternal ve maternal çekirdeklerin embriyonun ana ekseni boyunca zıt uçlarda konumlandığı ve füzyon için birbirlerine doğru hareket ettiği yeni döllenmiş embriyoları parlak alan kanalında tespit ederiz. Standart lamlar ile embriyo gözlemi için, GFP::Histon eksprese eden bir suş kullandık49 ve mCherry::PH50 sırasıyla hücre çekirdeğini ve hücre membranı dinamiklerini etiketlemek için kullanılır. Bu görüntüler, hücre bölünmesinin tamamını göstermek amacıyla farklı Z katmanlarında yakalanır (Ek Şekil S2 ve Ek Video S3). Embriyoların doğru aşamada tanımlanabilme yeteneğinin temel önem taşıdığına dikkat edilmelidir. Erken aşama embriyolar seçilmiş ve fiziksel bir bozucu etki yaratmadan gelişimsel ilerlemenin tamamını yakalamak için sürekli kayıt yöntemi uygulanmıştır. Bu yaklaşım, ... imkan tanır >döllenmeden kas seğirmesine kadar olan tüm süreci kapsayan 500 dakikalık hızlandırılmış kayıt (Şekil 2 ve Ek Video S5). Yaban tipine ek olarak, karşılaştırmalı görüntüleme çalışmaları için mutantlar da mevcuttur. Örneğin, organellerin, veziküllerin ve mRNA'nın dağılımında kritik roller oynayan ve hayvan fizyolojisi ile hücresel fonksiyonlar için önemli olan insan miyozin V'in homologu HUM-2'dir.51Örnek bir uygulama olarak protokol, aynı zamanda ... içindeki oluk dinamiklerini görüntülemek için de kullanılmıştır. hum-2 (ok596görsel karşılaştırma için mutant (Ek Şekil S3 ve Ek Video S4). Son olarak, .tiff görüntüleri ImageJ/Fiji ile işlenip kırpılır ve doğrudan görsel karşılaştırma için görüntü düzenleme yazılımında hizalanır52.
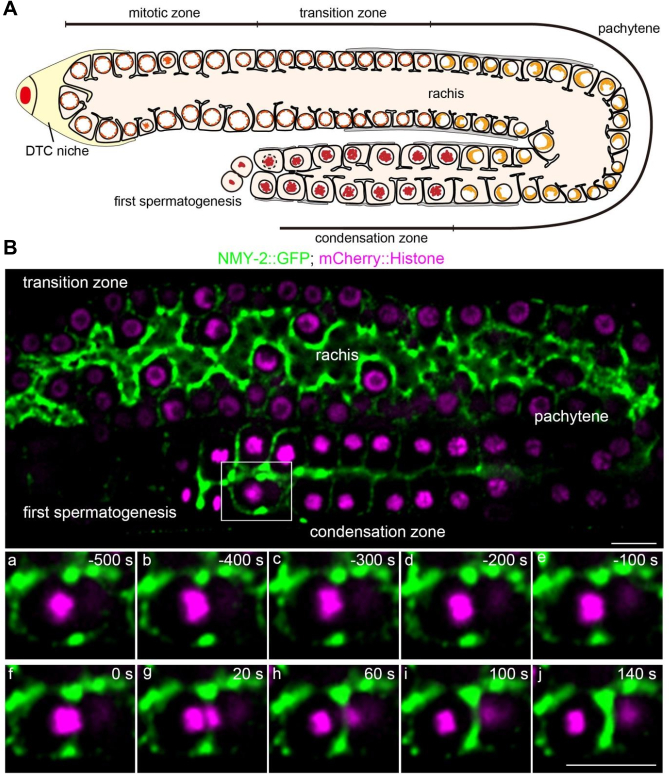
Şekil 1: Geç L4 evresindeki solucanlarda gonad bölge dağılımının şeması ve floresan görüntüsü. (A) Geç L4 evresindeki bir solucanın gonad yapısının şeması. DTC = distal uç hücresi. (B) Proksimal spermatositlerin rakhisini ve kortikal bölgesini etiketleyen NMY-2::GFP'yi ve farklı gelişim evrelerindeki nükleer morfolojiyi etiketleyen mCherry::Histone'u gösteren floresan görüntü. Ölçek çubuğu = 10 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
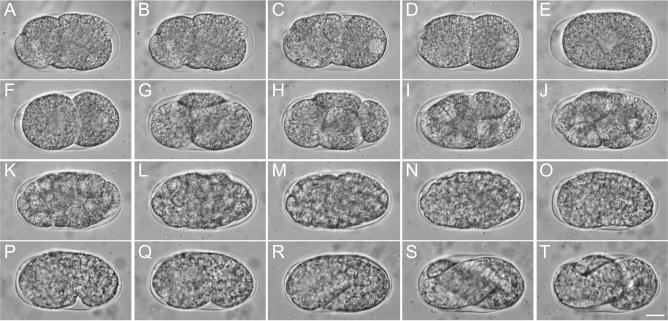
Şekil 2: C. elegans embriyonik gelişimi. (A-E) Oosit-sperm pronükleer migrasyonu ve füzyonu, psödoklevaj ve tek hücreli evrenin oluşumunu kapsayan füzyon aşamasından tek hücreli evreye geçiş. (F-J) İki hücreli evreden çok hücreli evreye geçiş. (K-O) Gastrülasyon evresi. (P-T) Virgül aşamasından kas seğirmesine kadar olan süreç. Ölçek çubuğu = 10 µm. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil S1: Tam spermatogenez görüntülemesinin temsili gösterimi. (A) Çekirdek zarının parçalanmasının başlangıcı. (B) Mayoz I'in prometafaz evresi. (C) Kontraktil halkanın oluşumu ve boğumlanmanın başlaması; (D) Mayoz I'in tamamlanması; (E) Mayoz II'nin başlangıcı. (F) İki sekonder spermatositin oluk boğumlanması. (G) Mayoz II'nin telofaz evresi. (H) Mayoz II'nin tamamlanması ile dört spermatid ve merkezi olarak konumlanmış bir rezidüel cismin oluşumu. Ölçek çubuğu = 10 µm. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Şekil S2: Hücre çekirdeğini işaretleyen GFP::Histone ve hücre membranını işaretleyen mCherry::PH ile erken embriyogenez görüntülemesinin temsili gösterimi. (A) Yalancı bölünme. (B) Bölünme oluğunun normal durumuna geri dönmesi. (C) İlk hücre bölünmesinin metafazı. (D) İlk hücre bölünmesinin anafazı. (E) İki hücreli evre. (F) AB hücresi bölünmesinin anafazı ve P1 hücresi bölünmesinin profazı. (G) P1 hücresi bölünmesinin anafazı. (H) Dört hücreli evre. Ölçek çubuğu = 10 µm. Lütfen bu dosyayı indirmek için buraya tıklayınız.
Ek Şekil S3: N2 ve hum-2 (ok596) mutantının erken embriyolarındaki bölünme oluğunun temsili karşılaştırması. Yakınlaştırma paneli, görsel karşılaştırma için zaman içindeki oluk dinamiklerini göstermektedir. Sayılar, kromozom ayrılmasıyla tanımlanan anafaz başlangıcından sonraki süreyi belirtir. Ölçek çubuğu = 2 µm. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Video S1. NMY-2::GFP ve mCherry::Histone kullanılarak geç L4 evresi gonadının temsili floresan zaman atımlı görüntülemesi; kare başına 30 s. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Video S2. him-5 (e1490) mutantlarında tam spermatogenezin temsilci parlak alan zaman atımlı görüntülemesi; kare başına 30 s. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Video S3. GFP::Histone ve mCherry::PH kullanılarak erken embriyogenezin temsili floresan zaman ayarlı görüntülemesi; kare başına 30 s. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Video S4. N2 ve hum-2 (ok596) mutantının erken embriyolarındaki bölünme oluğunun temsili floresan timelapse görüntülemesi; kare başına 15 s. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Video S5. Oosit-sperm pronükleer füzyonundan organizmayı meydana getiren mitotik bölünmelere kadar N2 C. elegans embriyonik gelişiminin temsili parlak alan zaman ayarlı görüntülemesi. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Solucanların hazırlanması ve görüntülenmesi için, sırasıyla kamaralara ve lamlara dayalı iki iş akışını optimize ettik. Kamara tabanlı yaklaşım, şunlar için kullanılmıştır: sınırlı fototoksisite/fotoblanşlanma ile gelişimsel süreçlerin uzun süreli gözlemlenmesine olanak tanıyan yüksek çözünürlüklü canlı görüntüleme53Lam bazlı yaklaşım, nöronal aktivitenin ve hücresel alt yapıların kısa süreli gözlemi için yaygın olarak kullanılan standart agaroz ped montaj tekniklerinden uyarlanmıştır.54Seçili bölgelerde uzun süreli gözlemler için her iki protokolü de (bölüm 3, 4, 5 ve 6) uyguladık. C. elegans erken gelişim evreleri. İlişkin olarak in vivo gonad yapısının, PGC bölünmelerinin veya spermatogenezin gözlemi için, önceden belirlenmiş yöntemlerin temel prosedürlerini izledik ve yeni araştırmacıların hızlı ve kolay erişimi için belirli modifikasyonlar yaptık55İle ilgili olarak in vitro spermatogenezin gözlemlenmesinde, nükleer zarın parçalandığı, profazdan metafaza geçiş yapan hücrelerin hızlıca tanınmasının önemini vurguluyoruz56Agaroz pedler, embriyoları veya solucanları belirli bir süre için tamponlayabilse ve kısmen stabilize edebilse de in vivo görüntülemede, primer spermatositler ile lam arasındaki kontrastı azaltırlar. Bu nedenle agaroz pedlerin kullanımı önerilmez in vitro diseke edilmiş spermatositlerin gözlemlenmesi; sıvı bir ortam tercih edilir. Benzer şekilde, ilgilenilen spesifik gelişim evrelerinin hızlıca tanınması şu durumlar için vurgulanmaktadır: in vitro embriyogenezin gözlemlenmesi.
Yukarıdaki yöntemler birleştirilerek, germ hattından embriyoya kadar seçilen gelişimsel olaylar görüntülenebilir. Bu yöntemler, canlı hücre görüntüleme için hızlı sıcaklık değişim sistemleri gibi sıcaklık kontrol ekipmanlarıyla da birleştirilebilir ve böylece sıcaklığa duyarlı mutantlar için deneyler daha kolay hale getirilebilir57. Benzer şekilde, soğutma tabanlı immobilizasyon, C. elegans popülasyonlarının doğrudan kültür plakaları üzerinde yüksek kapasiteli, submikron çözünürlüklü görüntülenmesine olanak tanıyarak, fizyolojik canlılığı korurken kimyasal anestezi veya bireysel solucan manipülasyonuna olan ihtiyacı azaltabilir58. Ek olarak, RNA interferans14 ve lazer ablasyonu59,60,61,62,63,64,65 gibi yapay perturbasyonlar, gelişimsel yanıtları ve temel biyolojik veya fiziksel mekanizmaları incelemek için mikroskopi ile birleştirilebilir. Gelecekte mikroskopi iş akışları; donanım, yazılım ve kullanıcıya özel operasyonların optimize edilmesiyle daha da geliştirilebilir33,66. Belirli operasyonel ayrıntıların ayarlanması gerekse de, bu protokolün seçili prensipleri meyve sinekleri ve zebra balığı larvaları gibi diğer küçük, hareketli hayvan modellerine, özellikle immobilizasyon gerektiren in vivo gözlemler ve diseksiyon gerektiren in vitro gözlemler için uyarlanabilir67,68.
Bu tür protokollerle elde edilen görüntü veri setleri, yeterli örnek sayısı ve standardize edilmiş veri toplama ayarları kullanıldığında, sonraki hesaplamalı veya kantitatif analizleri de destekleyebilir69,70. Örneğin, C. elegans embriyogenezi, her ikisi de spatiotemporal görüntüleme verilerine dayanan hücre soyu takibi71,72 ve hücre morfolojisi segmentasyonu73,74,75 çalışmalarında kullanılmıştır. Mekanistik bir perspektiften, çekirdeklerin, membranların, polarite ile ilişkili proteinlerin76,77,78 vele sitoskeleton ile ilişkili proteinlerin79,80,81 görüntülenmesi, hücre bölünmesi ve morfogenez analizlerini destekleyebilir. Kantitatif sistem biyolojisi, bu tür görüntüleme verilerini moleküler, hücresel ve organizma ölçeklerinde entegre edebilir82,83,84,85. Mevcut protokolde, bu daha geniş uygulamalar, temsilci sonuçlarla doğrudan kanıtlanmış çıktılardan ziyade potansiyel genişletmeler olarak görülmelidir.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması bulunmamaktadır.
Teşekkürler
Teknik destekleri için Northeastern Üniversitesi'nden Prof. Samuel H. Chung, Prof. Erin J. Cram, Prof. Javier Apfeld ve Dr. Noa William Franklin Grooms'a ve Beijing Normal Üniversitesi'nden Prof. Chuanfu Dong'a minnettarız. Bu çalışma, Dr. Pei Zhang'a verilen Ulusal Doğal Bilimler Vakfı Gençlik Projesi (Hibe 22407016) ve Ulusal Doğal Bilimler Vakfı Projesi (Hibe 22477010) tarafından finansal olarak desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 28 Gauge U-100 İnsülin Enjektörleri | EasyTouch | B08589MG8D | Solucan disseksiyonu |
| 35 mm Petri Kapları | Celltreat | 229638 | Görüntüleme hücresi |
| 60 mm'lik Petri Kapları | Fisherbrand | AS4050 | Solucan kültürü |
| Agaroz | Bio-Rad | 1613100 | Agaroz ped hazırlama |
| C. elegans RNAi Besleme Kütüphanesi (Ahringer) | Source BioScience Ltd. | Lütfen çevirilecek kaynak metni sağlayın. | RNAi deneyi |
| C. elegans suş: GFP::histone; mCherry::PH | Caenorhabditis Genetics Center | YC0154 | Bu çalışmada kullanılan suş |
| C. elegans suş: GFP::HUM-2 | Sunybiotech | YC0381 | Bu çalışmada kullanılan suş |
| C. elegans suş: him-5 (e1490) | Caenorhabditis Genetik Merkezi | CB4088 | Bu çalışmada kullanılan suş |
| C. elegans suş: N2, vahşi tip | Caenorhabditis Genetik Merkezi | N2 (Bristol) | Bu çalışmada kullanılan suş |
| C. elegans suş: NMY-2::GFP; mCherry::histon | Caenorhabditis Genetik Merkezi | YC0032 | Bu çalışmada kullanılan suş |
| C. elegans suş: PH::GFP; mCherry::histone | Caenorhabditis Genetik Merkezi | YC0029 | Bu çalışmada kullanılan suş |
| Diferansiyel İnterferans Kontrast (DIC) Mikroskobu | Olympus | BX53 | Solucan görüntüleme |
| Diseksiyon Stereomikroskopları | Nikon | SMZ745 | Solucan gözlemi |
| E. coli OP50 | Caenorhabditis Genetik Merkezi | OP50 | Bakteriyel besin kaynağı |
| Fetal bovine serum (FBS) (Fetal sığır serumu) | Lütfen çevrilecek metni sağlayın. | Lütfen çevirmemi istediğiniz kaynak metni sağlayın. Metni gönderdiğinizde, JoVE standartlarına ve belirttiğiniz akademik kriterlere uygun olarak profesyonel çevirisini gerçekleştireceğim. | Kültür tamponu |
| Dondurma tamponu (S tamponu/gliserol) | Girdi sağlanmadı. Lütfen çevrilmesini istediğiniz metni paylaşın. | Lütfen çevrilmesini istediğiniz kaynak metni sağlayın. | Uzun süreli saklama |
| Hibridizasyon lameli | Invitrogen (Thermo Fisher Scientific) | H18200 | Agaroz ped/hazne hazırlığı |
| İzopropil β-D-1-tiyogalaktopiranozid (IPTG) | Invitrogen (Thermo Fisher Scientific) | 15529019 | Solucan kültürü |
| Leibovitz L-15 besiyeri | Girdi sağlanmadı. Lütfen çevrilmesini istediğiniz metni giriniz. | Sistemle ilgili herhangi bir metin sağlanmamıştır. Lütfen çevrilmesini istediğiniz İngilizce kaynak metni iletiniz. | Kültür tamponu |
| Levamizol hidroklorür | Lütfen çevirmemi istediğiniz kaynak metni sağlayın. | Lütfen çevireceğim kaynak metni sağlayın. | Solucan immobilizasyonu |
| M9 tamponu | Sizden herhangi bir kaynak metin iletilmemiştir. Lütfen çevrilmesini istediğiniz İngilizce metni gönderiniz. | Lütfen çevrilecek metni sağlayın. | Solucan kültürü ve preparat hazırlama |
| Mikroskop Lamel Camı | Fisherbrand | 12541016 | Görüntüleme lamları |
| Mini dijital inkübatör | Benchmark Scientific | BMS-H2200-HC-E | Solucan kültürü |
| NGM ön karışımlı toz | Sistemde herhangi bir kaynak metin bulunmamaktadır. Lütfen çevrilmesini istediğiniz metni sağlayın. | Uygulanamaz | Solucan kültürü |
| Nikon Eclipse Ti2-E Ters Mikroskop | Nikon | Ti2-E | Solucan görüntüleme |
| Düz Mikroskop Lamları | Fisherbrand | 12550A3 | Görüntüleme lamları |
| Düz mikroskop lamları | Corning | 2947-75X25 | Agaroz ped hazırlama |
| Döner disk konfokal mikroskobu | Olympus | SpinSR10 | Solucan görüntüleme |
| Spinning-disk konfokal ünitesi | Yokogawa | CSU-X1 | Zaman ayarlı görüntüleme |
| Tetramisole | Sigma-Aldrich | L9756 | Solucan anestezisi |
| Vazelin | Sangon Biotech | A510146-0500 | Görüntüleme lamları |
Kaynaklar
- Corsi AK, Wightman B, Chalfie M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 2015;200(2):387-407.
- Ambros VR, et al. From nematode to Nobel: how community-shared resources fueled the rise of Caenorhabditis elegans as a research organism. Proc Natl Acad Sci U S A. 2025;122(48):e2522808122.
- Du Z, et al. De novo inference of systems-level mechanistic models of development from live-imaging-based phenotype analysis. Cell. 2014;156(1):359-72.
- Xiao L, et al. Defect-buffering cellular plasticity increases robustness of metazoan embryogenesis. Cell Syst. 2022;13(8):615-30.e9.
- Green RA, et al. Automated profiling of gene function during embryonic development. Cell. 2024;187(12):3141-60.e23.
- Yang M, Bai Y, Wang Z, Du Z. Intracellular buffering enables developmental robustness after genome doubling in C. elegans embryos. Cell Rep. 2026;45(3):117005.
- Laugsch M, Schierenberg E. Differences in maternal supply and early development of closely related nematode species. Int J Dev Biol. 2004;48(7):655-62.
- Guan G, Luo C, Tang HL, Tang C. Modulating cell proliferation by asymmetric division: a conserved pattern in the early embryogenesis of nematode species. MicroPubl Biol. 2024;10.17912/micropub.biology.001006.
- Large CRL, et al. Lineage-resolved analysis of embryonic gene expression evolution in C. elegans and C. briggsae. Science. 2025;388(6753):eadu8249.
- Zhang P, et al. Biosynthesis of modular signaling molecules requires functional diversification of carboxylesterases in Pristionchus pacificus. Commun Biol. 2025;8(1):1213.
- Brenner S. The genetics of Caenorhabditis elegans. Genetics. 1974;77(1):71-94.
- Sulston JE, Schierenberg E, White JG, Thomson JN. The embryonic cell lineage of the nematode Caenorhabditis elegans. Dev Biol. 1983;100(1):64-119.
- C. elegans Sequencing Consortium. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 1998;282(5396):2012-8.
- Chung SH, et al. Femtosecond laser ablation reveals antagonistic sensory and neuroendocrine signaling that underlie C. elegans behavior and development. Cell Rep. 2013;4(2):316-26.
- Zhang H, Abraham N, Khan LA, Gobel V. RNAi-based biosynthetic pathway screens to identify in vivo functions of non-nucleic acid-based metabolites such as lipids. Nat Protoc. 2015;10(5):681-700.
- Huang X, et al. PIWI-interacting RNA expression regulates pathogenesis in a Caenorhabditis elegans model of Lewy body disease. Nat Commun. 2023;14(1):6137.
- Schnabel R, Hutter H, Moerman D, Schnabel H. Assessing normal embryogenesis in Caenorhabditis elegans using a 4D microscope: variability of development and regional specification. Dev Biol. 1997;184(2):234-65.
- Wang X, Hu B, Zhao Z, Tse YC. From primordial germ cells to spermatids in Caenorhabditis elegans. Semin Cell Dev Biol. 2022;127:110-20.
- L’Hernault SW. Spermatogenesis. In: Riddle DL, Blumenthal T, Meyer BJ, Priess JR, editors. C. elegans II. 2nd edition. Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY; 1997.
- Wang X, et al. Cortical recruitment of centralspindlin and RhoA effectors during meiosis I of Caenorhabditis elegans primary spermatocytes. J Cell Sci. 2021;134(3):jcs238543.
- Hu J, et al. Distinct roles of two myosins in C. elegans spermatid differentiation. PLoS Biol. 2019;17(4):e3000211.
- Kovacevic I, Orozco JM, Cram EJ. Filamin and phospholipase C-ε are required for calcium signaling in the Caenorhabditis elegans spermatheca. PLoS Genet. 2013;9(5):e1003510.
- Sadeghian F, Grooms NWF, Chung SH, Cram EJ. Tensions on the actin cytoskeleton and apical cell junctions in the C. elegans spermatheca are influenced by spermathecal anatomy, ovulation state and activation of myosin. Front Cell Dev Biol. 2024;12:1490803.
- Hoege C, Hyman AA. Principles of PAR polarity in Caenorhabditis elegans embryos. Nat Rev Mol Cell Biol. 2013;14(5):315-22.
- Simske JS, Hardin J. Getting into shape: epidermal morphogenesis in Caenorhabditis elegans embryos. Bioessays. 2001;23(1):12-23.
- Zhang H, Emmons SW. Regulation of the Caenorhabditis elegans posterior hox gene egl-5 by microRNA and the polycomb-like gene sop-2. Dev Dyn. 2009;238(3):595-603.
- Zhang N, et al. The C. elegans intestine as a model for intercellular lumen morphogenesis and in vivo polarized membrane biogenesis at the single-cell level: labeling by antibody staining, RNAi loss-of-function analysis and imaging. J Vis Exp. 2017;(128):e56100.
- Zhang N, et al. The C. elegans excretory canal as a model for intracellular lumen morphogenesis and in vivo polarized membrane biogenesis in a single cell: labeling by GFP-fusions, RNAi interaction screen and imaging. J Vis Exp. 2017;(128):e56101.
- Cui M, et al. A model of hereditary sensory and autonomic neuropathy type 1 reveals a role of glycosphingolipids in neuronal polarity. J Neurosci. 2019;39(29):5816-34.
- Li Z, et al. A collection of toolkit strains reveals distinct localization and dynamics of membrane-associated transcripts in epithelia. Cell Rep. 2021;35(5):109072.
- Cheng X, et al. Proteotoxic stress disrupts epithelial integrity by inducing MTOR sequestration and autophagy overactivation. Autophagy. 2022;19(1):241-55.
- Zhang P, et al. The centralspindlin complex regulates cytokinesis and morphogenesis in the C. elegans spermatheca. Development. 2023;150(2):dev200840.
- Wang YL, Grooms NWF, Civale SC, Chung SH. Confocal imaging capacity on a widefield microscope using a spatial light modulator. PLoS One. 2021;16(2):e0244034.
- Stiernagle T. Maintenance of C. elegans. WormBook. 2006;1-11.
- Hirsh D, Vanderslice R. Temperature-sensitive developmental mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):220-35.
- Davies T, et al. Using fast-acting temperature-sensitive mutants to study cell division in Caenorhabditis elegans. Methods Cell Biol. 2017;137:283-306.
- Ward S, Miwa J. Characterization of temperature-sensitive, fertilization-defective mutants of the nematode Caenorhabditis elegans. Genetics. 1978;88(2):285-303.
- Vanderslice R, Hirsh D. Temperature-sensitive zygote defective mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):236-49.
- Fujita M, Onami S. Cell-to-cell heterogeneity in cortical tension specifies curvature of contact surfaces in Caenorhabditis elegans embryos. PLoS One. 2012;7(1):e30224.
- Nishikawa M, Naganathan SR, Jülicher F, Grill SW. Controlling contractile instabilities in the actomyosin cortex. eLife. 2017;6:e19595.
- Kimble J, Hirsh D. The postembryonic cell lineages of the hermaphrodite and male gonads in Caenorhabditis elegans. Dev Biol. 1979;70(2):396-417.
- Onuaguluchi G, Igbo IN. Comparative local anaesthetic and antiarrhythmic actions of levamisole hydrochloride and lignocaine hydrochloride. Arch Int Pharmacodyn Ther. 1987;289(2):278-89.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Weisbart E, et al. CellProfiler plugins - an easy image analysis platform integration for containers and Python tools. J Microsc. 2024;296(3):227-34.
- Rueckl M, et al. SamuROI, a Python-based software tool for visualization and analysis of dynamic time series imaging at multiple spatial scales. Front Neuroinform. 2017;11:44.
- Kachur TM, Audhya A, Pilgrim DB. UNC-45 is required for NMY-2 contractile function in early embryonic polarity establishment and germline cellularization in C. elegans. Dev Biol. 2008;314(2):287-99.
- Schmutz C, Stevens J, Spang A. Functions of the novel RhoGAP proteins RGA-3 and RGA-4 in the germ line and in the early embryo of C. elegans. Development. 2007;134(19):3495-505.
- Chartier NT, et al. PAR-4/LKB1 mobilizes nonmuscle myosin through anillin to regulate C. elegans embryonic polarization and cytokinesis. Curr Biol. 2011;21(4):259-69.
- Knight AJ, Johnson NM, Behm CA. VHA-19 is essential in Caenorhabditis elegans oocytes for embryogenesis and is involved in trafficking in oocytes. PLoS One. 2012;7(7):e40317.
- Murata D, et al. GPI-anchor synthesis is indispensable for the germline development of the nematode Caenorhabditis elegans. Mol Biol Cell. 2012;23(6):982-95.
- Wong S, Weisman LS. Roles and regulation of myosin V interaction with cargo. Adv Biol Regul. 2021;79:100787.
- McLean D. Adobe Photoshop and Illustrator techniques. J Audiov Media Med. 2002;25(2):79-81.
- Gabel CV, et al. Neural circuits mediate electrosensory behavior in Caenorhabditis elegans. J Neurosci. 2007;27(28):7586-96.
- Chung SH, Sun L, Gabel CV. In vivo neuronal calcium imaging in C. elegans. J Vis Exp. 2013;(74):50357.
- McCarter J, Bartlett B, Dang T, Schedl T. On the control of oocyte meiotic maturation and ovulation in Caenorhabditis elegans. Dev Biol. 1999;205(1):111-28.
- L’Hernault SW. Spermatogenesis. WormBook. 2006;1-14.
- Pitayu-Nugroho L, et al. Kinetochore component function in C. elegans oocytes revealed by 4D tracking of holocentric chromosomes. Nat Commun. 2023;14(1):4032.
- Wang YL, et al. High-throughput submicron-resolution microscopy of Caenorhabditis elegans populations under strong immobilization by cooling cultivation plates. iScience. 2023;26(2):105999.
- Chung SH, et al. The role of the AFD neuron in C. elegans thermotaxis analyzed using femtosecond laser ablation. BMC Neurosci. 2006;7(1):30.
- Chung S, Maxwell I, Mazur E. Subcellular surgery and nanoneurosurgery [conference paper]. Presented at: Conference on Lasers and Electro-Optics; Baltimore, MD; 2007. p. 1-2.
- Chung SH, Mazur E. Femtosecond laser ablation of neurons in C. elegans for behavioral studies. Appl Phys A Mater Sci Process. 2009;96(2):335-41.
- Chung SH, Mazur E. Surgical applications of femtosecond lasers. J Biophotonics. 2009;2(10):557-72.
- Cai H, et al. Wedge prism approach for simultaneous multichannel microscopy. Sci Rep. 2019;9(1):17795.
- Chung SH, et al. Novel DLK-independent neuronal regeneration in Caenorhabditis elegans shares links with activity-dependent ectopic outgrowth. Proc Natl Acad Sci U S A. 2016;113(20):E2852-60.
- Grooms NWF, et al. Expression of thioredoxin-1 in the ASJ neuron corresponds with and enhances intrinsic regenerative capacity under lesion conditioning in C. elegans. FEBS Lett. 2023;597(14):1880-93.
- Wang YL, et al. Widefield targeted illumination microscopy enables optically-sectioned, motion-resilient imaging of neuronal fibers and their dynamics. Laser Photon Rev. 2025;19(24):e01980.
- Ghaemi R, Rezai P, Nejad FR, Selvaganapathy PR. Characterization of microfluidic clamps for immobilizing and imaging of Drosophila melanogaster larva’s central nervous system. Biomicrofluidics. 2017;11(3):034113.
- Bauer B, Mally A, Liedtke D. Zebrafish embryos and larvae as alternative animal models for toxicity testing. Int J Mol Sci. 2021;22(24):13417.
- Ho VWS, et al. Systems-level quantification of division timing reveals a common genetic architecture controlling asynchrony and fate asymmetry. Mol Syst Biol. 2015;11(6):MSB145857.
- Packer JS, et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 2019;365(6459):eaax1971.
- Bao Z, et al. Automated cell lineage tracing in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 2006;103(8):2707-12.
- Katzman B, Tang D, Santella A, Bao Z. AceTree: a major update and case study in the long term maintenance of open-source scientific software. BMC Bioinform. 2018;19(1):121.
- Cao J, et al. Establishment of a morphological atlas of the Caenorhabditis elegans embryo using deep-learning-based 4D segmentation. Nat Commun. 2020;11(1):6254.
- Guan G, et al. Cell lineage-resolved embryonic morphological map reveals signaling associated with cell fate and size asymmetry. Nat Commun. 2025;16(1):3700.
- Guan G, et al. EmbSAM: cell boundary localization and Segment Anything Model for fast images of developing embryos. Commun Biol. 2026;9(1):8.
- Goehring NW, et al. Polarization of PAR proteins by advective triggering of a pattern-forming system. Science. 2011;334(6059):1137-41.
- Zhang H, et al. Vesicular sorting controls the polarity of expanding membranes in the C. elegans intestine. Worm. 2013;2(1):e23702.
- Zhang H, et al. Clathrin and AP-1 regulate apical polarity and lumen formation during C. elegans tubulogenesis. Development. 2012;139(11):2071-83.
- Kajita A, Yamamura M, Kohara Y. Computer simulation of the cellular arrangement using physical model in early cleavage of the nematode Caenorhabditis elegans. Bioinformatics. 2003;19(6):704-16.
- Zhang H, et al. Apicobasal domain identities of expanding tubular membranes depend on glycosphingolipid biosynthesis. Nat Cell Biol. 2011;13(10):1189-201.
- Pimpale LG, Middelkoop TC, Mietke A, Grill SW. Cell lineage-dependent chiral actomyosin flows drive cellular rearrangements in early Caenorhabditis elegans development. eLife. 2020;9:e54930.
- Hench J, Henriksson J, Lüppert M, Bürglin TR. Spatio-temporal reference model of Caenorhabditis elegans embryogenesis with cell contact maps. Dev Biol. 2009;333(1):1-13.
- Richards JL, et al. A quantitative model of normal Caenorhabditis elegans embryogenesis and its disruption after stress. Dev Biol. 2013;374(1):12-23.
- Moore JL, Du Z, Bao Z. Systematic quantification of developmental phenotypes at single-cell resolution during embryogenesis. Development. 2013;140(15):3266-74.
- Wong MK, et al. Timing of tissue-specific cell division requires a differential onset of zygotic transcription during metazoan embryogenesis. J Biol Chem. 2016;291(24):12501-13.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında