Türler arası etkileşimler sırasında fungal morfolojik yanıtların kalitatif ve kantitatif değerlendirmesi için iki temassız ko-kültür yaklaşımı açıklanmıştır. Protokol, bir Candida türler arası deneyi örneği üzerinden, içsel faktörlerin hif büyümesini nasıl etkilediğini göstermektedir. Bu yöntemler, çeşitli organizmalarda mikrobiyal türler arası iletişimi incelemek için kolayca uyarlanabilir.
Yöntem makalesi
Mantarlardaki Türler Arası Etkileşimler Sırasında Morfometrik Çalışmalar İçin Temassız Ko-Kültür Deneyleri
Bu makalede
Özet
Özet
Mikrobiyal bir toplulukta hücresel davranış ve morfoloji genellikle çeşitli hücre içi ve hücre dışı faktörlerden etkilenir. Mikrobiyal iletişimi incelemek için mevcut olan farklı yaklaşımlar zahmetli olabilir ve/veya özel tesisler ile uzmanlık gerektirebilir. Burada, belirli bir türler arası etkileşimdeki çeşitli faktörlerin rolünü araştırmak için ölçülebilir bir yanıt olarak morfolojik geçişe dayanan, birbirini tamamlayıcı iki temassız ko-kültür yaklaşımı olan membran insertli kuyucuk plaka ko-kültür analizi ve Hücreden Arındırılmış Süpernatant (CFS) tabanlı analiz açıklanmaktadır. Membran insertli kuyucuk plaka sistemi, hücre dışı moleküllerin difüzyonuna izin verirken, fiziksel olarak ayrılmış türler arasında gerçek zamanlı etkileşim sağlar. Buna karşılık, CFS tabanlı analiz, kondisyonlu medyuma verilen yanıtların değerlendirilmesi için basitleştirilmiş ve ölçeklendirilebilir bir yaklaşım sunar. Burada sunulan protokol; kültür hazırlama, kondisyonlu süpernatantların üretimi, analiz kurulumu, mikroskopi, görüntü elde etme, Fiji kullanılarak yapılan kantitatif morfometrik analiz ve istatistiksel değerlendirme için standartlaştırılmış prosedürleri içermektedir. Bu durum, mantarların içsel ve dışsal faktörlere verdiği morfolojik yanıt örneğiyle gösterilmiştir. Burada sunulan yöntemler, bir topluluktaki yeni mikrobiyal etkileşimleri incelemek için erişilebilir ve uyarlanabilir alternatif araçlar sunmakta olup, bir toplulukta çok türlü bir arada yaşamanın altında yatan mekanizmaları araştırmak için kolayca genişletilebilir.
Giriş
Doğal ve klinik ekosistemlerde mikroorganizmalar tipik olarak, karmaşık tür içi ve türler arası iletişim ağları tarafından yönetilen yapılandırılmış polimikrobiyal topluluklar içinde bulunurlar1. Bu konsorsiyumlar, popülasyon düzeyindeki davranışları koordine etmek için quorum sensing molekülleri, uçucu organik maddeler, salgılanan peptid ve proteinler dahil olmak üzere çeşitli kimyasal sinyaller kullanırlar2. Kooperatif, rekabetçi veya yırtıcı niş etkileşimleri mikrobiyal metabolizmayı, uzaysal mimariyi ve strese adaptasyonu önemli ölçüde değiştirdiğinden, bu iletişim dinamiklerinin haritalandırılması kritiktir3. Klinik olarak, bu polimikrobiyal ağlar (çift türlü bakteriyel-fungal veya türler arası fungal-fungal konsorsiyumlar gibi), monokültürlere kıyasla sıklıkla sinerjik virülans, hızlandırılmış doku kolonizasyonu ve artmış antimikrobiyal direnç sergilerler4,5. Bu nedenle, mikrobiyal iletişimlerin moleküler belirleyicilerini çözmek, geleneksel modellerin ötesine geçmek ve topluluk stabilitesini bozacak yenilikçi anti-enfektif stratejiler geliştirmek için hayati önem taşımaktadır6.
Mikrobiyal etkileşimin farklı modlarını çözümlemek için araştırmacılar, öncelikle memeli hücresi biyolojisi, immünoloji ve onkolojide kullanılan çeşitli deneysel konfigürasyonlardan yararlanırlar7,8,9. Örneğin, doğrudan temaslı ko-kültür modelleri, juksakrin sinyalleşmenin ve fiziksel hücreden hücreye etkileşimlerin araştırılmasında standart olarak hizmet eder10. Benzer düzenekler, modifikasyonlarla birlikte mikroplar arasındaki fiziksel etkileşimleri incelemek, mikroplar arası inhibisyonu veya ilaç yanıtını anlamak için de kullanılır9,11,12. Ancak, hem temasa bağımlı hem de difüzyonla yayılan sinyaller gözlemlenen yanıta katkıda bulunduğu için temel mekanizmaları ayırt etmek zordur. Geleneksel temas tabanlı analizler mekansal içgörüler sağlayabilse de, zahmetlidir ve/veya model olmayan organizmalar için yorucu olabilen farklı suş etiketlemesi gerektirir. Buna karşılık, Transwell (membran insertli kuyucuk plakası) analizleri, çoğunlukla memeli çalışmalarında, temasa bağımlı ve difüzyonla yayılan sinyallerin katkılarını ayırt etmek için kullanılır13,14,15,16. Bu yöntem, hücresel iletişimin salgılanan moleküller aracılığıyla gerçekleştiği durumlarda özellikle yararlıdır ve hücre popülasyonları arasındaki sinyalleşme dinamiklerinin gerçek zamanlı analizine olanak tanır17. Ayrıca, temassız analizler, geleneksel yöntemlerin kaçırdığı mikropları dinamik olarak takip etmek için deneyleri hesaplamalı modellerle entegre edebilen membran ayırma avantajını sunar18. Bu yaklaşım, zaman zaman farklı bakteri türlerinin gelişimsel kinetiğini eş zamanlı olarak incelemek için kullanılır19.
Membran insertli kuyucuk plakası analizine daha ucuz ve yüksek kapasiteli bir alternatif, Hücre Dışı Süpernatant (CFS) tabanlı veya kondisyonlu besiyeri tabanlı analizdir. Bunun, rejeneratif tıp ve vasküler biyolojide, kök hücre aracılı doku onarımını ve/veya tümör kaynaklı anjiyogenezi anlamak için gerekli olan sekretomları izole etmek amacıyla kullanıldığı bilinmektedir20. Benzer şekilde, mikrobiyolojik çalışmalarda CFS çerçeveleri, polimikrobiyal rekabetin çözümlenmesinde yararlı olmuştur. Örneğin, bakteriyel filtratlar ( Pseudomonas aeruginosa asil-homoserin laktonları veya Lactobacillus metabolitleri gibi), fungal biyofilm olgunlaşmasını modüle etmek için kullanılmıştır21,22. Yakın zamanda, mikroakışkan platformlar, çip üzerinde organ teknolojileri aracılığıyla yüksek sadakatli fizyolojik biyomimikriye olanak sağlamıştır23,24. Mikroakışkan sistemler, mikrobiyal topluluğun kendi sekretomlarına verdiği yanıtın eş zamanlı tespiti için uygulanmış olsa da, uzmanlaşmış cihazlar ve bilgi birikimi gerektirmekte olup her ortamda kolayca uygulanamayabilir25,26,27. Bu nedenle, membran insertli kuyucuk plakası ve CFS tabanlı analizlerin çoğu durumda tercih edilen yöntemler olacağı öngörülmektedir. Bu iki analiz arasındaki seçim, salgılayan molekülün doğasına bağlı olacaktır. Eğer salgılayan molekül kararsızsa, yani yarı ömrü kısaysa ve gerçek zamanlı aktivitenin ölçülmesi gerekiyorsa, membran insertli kuyucuk plakası analizi daha uygundur. Öte yandan, salgılayan molekül kararlıysa ve deney büyük ölçekliyse, CFS tabanlı bir analiz daha ekonomik olacaktır.
Bu protokolün temel amacı, membran insert kuyucuk plakası ve CFS platformlarını kullanarak morfolojik özelliklerin değerlendirilmesi için adım adım kalitatif ve kantitatif bir takip metodolojisi sunmaktır (Şekil 1). Burada, örnek olarak Candida albicans ve Candida glabrata arasındaki salgı faktörü güdümlü iletişim ile gösterilmiştir. Ayrıca bu araçlar, sekretuar sinyal moleküllerine maruz kalındığında, C. albicans filamentlerinin mutlak geometrik gelişimindeki (uzunluk, hacim ve çap) değişiklikler üzerinde içsel genetik değişkenlerin (ploidi ve çiftleşme lokusu durumu) etkilerini de nicelleştirebilir. Bu yerleşik protokol, türler arası sinyalizasyon dinamiklerini çalışmaya uygun, basit ve uygun maliyetli, temassız bir platform sağlar.
Protokol
Hem C. albicans hem de C. glabrata, Biyogüvenlik Düzeyi 2 (BSL-2) insan fırsatçı patojenleri olarak sınıflandırılır. Tüm deneysel adımlar, İyi Mikrobiyolojik Uygulamalar'a (GMP) ve kurumsal muhafaza prosedürlerine sıkı sıkıya bağlı kalınarak, sertifikalı Biyogüvenlik Kabinleri içerisinde yürütülmelidir. Laboratuvar önlükleri, çift eldiven ve koruyucu gözlükler dahil olmak üzere kişisel koruyucu ekipmanlar (PPE) süreç boyunca giyilmelidir. Tüm kontamine sarf malzemeleri, plastik gereçler ve sıvı kültürler, nihai bertaraf öncesinde valide edilmiş otoklavlama (121 °C, 15 psi, 20 dk boyunca) işlemine veya taze hazırlanmış %10 sodyum hipoklorit çözeltisi kullanılarak kimyasal dezenfeksiyona tabi tutulmalıdır (Önerilen: National Institutes of Health (NIH) Atık Bertaraf Kılavuzu 2022). Bu metodoloji boyunca kullanılan tüm standart reaktifler, analitik saflıktaki kimyasallar ve ekipmanlar Malzemeler Tablosu'nda açıklanmıştır. Fungal suş özellikleri ve arka plan genotipleri Tablo 1'de ayrıntılı olarak verilmiştir. Bu çalışmada kullanılan besiyerlerinin listesi ve bileşimleri Ek Dosya 1'de sunulmuştur.
1. Hücreden Arındırılmış Süpernatantın (CFS) Hazırlanması
- Kültür başlatma ve inkübasyon
- Steril plastik bir öze kullanarak, taze olarak Glikoz Minimal Medyum (GMM) agar plaklarında28 büyütülmüş tek bir izole C. glabrata CBS138 kolonisini seçin. Koloniyi, 10 mL standart Maya Pepton Dekstroz (YPD) besiyeri (%1 w/v maya ekstraktı, %2 w/v pepton, %2 w/v D-glikoz)29 içeren steril bir cam tüpe inoküle edin.
- Tüpü orbital çalkalamalı bir inkübatöre yerleştirin. Kültürü 37 °C sabit sıcaklıkta, 200 rpm sürekli ajitasyonla 18 saat boyunca inkübe edin.
- Optik yoğunluğun (OD600) 12,0 ile 14,0 arasındaki stabil bir aralıkta olduğunu kontrol ederek, kültürün tekdüze bir şekilde geç stasyoner büyüme fazına girdiğini doğrulayın. Hücrelerin maya formunda olduğunu ve kontaminasyon içermediğini belirlemek için mikroskop altında gözlemleyin. Bu gelişim penceresi, stabil ekstrasellüler sekretom bileşenlerinin optimal düzeyde birikmesini sağlamak için gereklidir.
- Hücre ayırma ve filtrasyon
- 18 saatlik C. glabrata sıvı kültürünü aseptik olarak steril bir 15 mL konik polipropilen santrifüj tüpüne aktarın.
- Tüpleri dengeleyin ve biyokütleyi sıkı bir pelet haline getirmek için kültürü, 25 °C kontrollü oda sıcaklığında tam olarak 5 dakika boyunca 5,000 x g hızda santrifüjleyin.
- Ham sıvı supernatantı temiz, steril bir 20 mL plastik şırıngaya boşaltın. Şırıngayı dikkatlice steril bir 0.22 µm Polyethersulfone (PES) düşük protein bağlayıcı membran filtreye takın.
- Sıvıyı PES filtreden geçirerek steril bir 15 mL toplama tüpüne aktarmak için sabit mekanik basınç uygulayın ve böylece çalışma Hücreden Arındırılmış Supernatantı (CFS) elde edin. Filtrasyon sırasında direnç hissedilirse, membranın yırtılmasına neden olabileceği için aşırı basınç uygulamayın. Bu gibi durumlarda, taze bir membran filtre kullanın.
NOT: Deneyi kurmadan önce, yeni hasat edilmiş CFS'yi hızlı dondurma-çözme döngülerine veya 4 °C'nin altındaki saklama sıcaklıklarına maruz bırakmayın, çünkü soğuk çökelme düşük bolluktaki protein faktörlerini destabilize edebilir. - Doğrudan eşlik eden membran insert kuyucuklu plaka ko-kültür deneyine (Adım 4) geçilecekse, hedef sıkıştırılmış hücre peletini ilk toplama tüpünde muhafaza edin.
2. Hifal indüksiyon deneyleri için Candida albicans inokülümunun hazırlanması
- İnokulum hazırlığı ve bakımı
- Hedef C. albicans suşlarını (genotipler için Tablo 1'e bakınız) doğrudan -80 °C'de saklanan uzun süreli ana gliserol stoklarından geri çağırın. Çalışma kolonileri oluşturmak için hücreleri katı GMM plaklarına (a/h %0,67 amino asitsiz maya azot bazı, a/h %2 D-glukoz, a/h %2 agar) ekin.
- Diploid suşlar (SC5314, RBY1132, RBY1133) için: Tek bir koloniyi 5 mL sıvı GMM'ye ekleyin. Tüpü 200 rpm'de sabit ajitasyon altında, 37 °C'de 12 sa boyunca inkübe edin.
NOT: Diploid hücrelerin gece boyu hazırlanmasında minimal medyum (GMM) kullanımı, besin açısından zengin medyumlarda sıklıkla görülen spontane oto-filamentasyonu baskılamak için kritik öneme sahiptir. - Haploid suşlar (GZY896, GZY803) için: İzole bir koloniyi 0,1 mg/mL üridin ile desteklenmiş 5 mL sıvı YPD besiyerine (YPDU) ekleyin. Tüpü 200 rpm'de sürekli ajitasyonla 37 °C'de 12 sa boyunca inkübe edin.
- Morfolojik stabiliteyi korumak ve tutarlılığı sağlamak için, ardışık sıvı alt kültürleri maksimum üç pasajla sınırlandırın. Başlangıç kontrol havuzunda oto-filamentasyon veya psödohifal kümelenme %2'yi aşarsa, suşu atın ve ana dondurucu stoklardan taze hücreler canlandırın.
- Normalizasyon
- Gece boyu bekletilen sıvı kültürlerden 1 mL'lik miktarları steril küvetlere paylaştırın. Kör kontrol olarak taze GMM veya YPDU besiyerini kullanarak, kalibre edilmiş bir UV-Görünür spektrofotometre ile 600 nm'deki kesin absorbansı (OD600) ölçün.
NOT: Gece boyu bekletilen sıvı kültürlerin, özellikle YPDU'da büyütülenlerin OD600 değeri (hücre yoğunluğu), spektrofotometrenin hassasiyet aralığını aşabilir. Bu gibi durumlarda, ölçümleri yapmadan önce kültürleri uygun şekilde (10–20 kat) seyreltin. - Standart bir hedef süspansiyon oluşturmak için gereken yoğun kültür hacmini hesaplayın. Kesin final OD600 = 0,1 değerine ayarlanmış 1 mL'lik bir çalışma inokulumu oluşturmak için hücreleri steril bir tüp içinde önceden ısıtılmış (37 °C) sıvı GMM ile seyreltin.
- Gece boyu bekletilen sıvı kültürlerden 1 mL'lik miktarları steril küvetlere paylaştırın. Kör kontrol olarak taze GMM veya YPDU besiyerini kullanarak, kalibre edilmiş bir UV-Görünür spektrofotometre ile 600 nm'deki kesin absorbansı (OD600) ölçün.
3. CFS tabanlı hifal indüksiyon analizi (96 kuyucuklu plaka formatı)
- Analiz kurulumu
- Steril, optik olarak şeffaf, düz dipli 96 kuyucuklu polistiren mikrotitrasyon plakası kullanın.
- Test kuyucuğu konfigürasyonu: Dağıtma 45 µL taze filtrelenmiş olanın C. glabrata CFS'yi (Adım 1.2.4'ten) doğrudan belirlenmiş test kuyucuklarına ekleyin. Ekleyin 45 µL steril GMM besiyeri (veya haploid hedef suşlar değerlendiriliyorsa YPDU besiyeri) şeklinde.
- Negatif ortam kontrolleri: Ekleyin 90 µL GMM besiyerini kontrol kuyucuklarına ekleyin. Ayrıca, ayrı bir kuyucukta karıştırın 45 µL steril GMM besiyerinden, içeriğinde şunlar bulunan 45 µL bazal ortam bileşenlerini izlemek amacıyla ekim yapılmamış boş YPD besiyeri sıvısı.
- Pozitif indüksiyon kontrolleri: Ekleyin 80 µL ... ile kombine edilmiş GMM besiyerinin 10 µL Fetal Bovine Serum (FBS; nihai konsantrasyon %10 v/v) içeren.
- İnokülasyon: Tam olarak dağıtın 10 µL normalize edilmiş OD'nin600 = 0,1'i C. albicans (Adım 2.2.2'den gelen) çalışan inokülümü şuna 90 µL tüm deney ve kontrol kuyucuklarına uygun miktarda besiyeri.
- İnkübasyon ve veri toplama
- Buharlaşmayı minimize etmek için 96 kuyucuklu plakayı uygun plastik kapağıyla kapatın. Plakayı, şu sıcaklıkta tutulan statik bir inkübatöre yerleştirin: 37 °C tam olarak 3 saat boyunca. Stabil filaman oluşumuna izin vermek için bu süre zarfında plağın kaydırılmasından veya sarsılmasından kaçının.
- İnkübasyonun ardından, çok kuyucuklu plakayı; parlak alan optikleri ve entegre bir dijital CCD kamera modülü ile donatılmış ters bir ışık mikroskobunun tablasına dik olarak yerleştirin.
- Kuyu başına en az beş farklı görüş alanı boyunca otomatik veya manuel olarak sistematik görüntüleme yapın.
- Bu analiz konfigürasyonunu, her koşul için net teknik dublikatlarda ve farklı günlerde hazırlanmış en az üç tam bağımsız biyolojik replikatta gerçekleştirin.
4. Membran insert kuyucuklu plaka ko-kültür analizi
- Abluminal (alt) bölme kurulumu
- Steril bir 24 kuyucuklu doku kültürü taşıyıcı plakası alın.
- Normalize edilmiş OD600 = 0.1 C. albicans hücre süspansiyonundan (Adım 2.2.2'den) tam olarak 1.0 mL'yi alt abluminal bölmelere dağıtın.
- Luminal (üst) bölme kurulumu
- Adım 1.2.5 sırasında kenara ayrılan C. glabrata hücre peletini alın. Peleti 1 mL steril GMM besiyerinde resüspande edin, 5000 x g hızda 3 dk boyunca santrifüjleyin ve sıvıyı dökün. Kalan besin bileşenlerini veya eski besiyeri elementlerini uzaklaştırmak için bu yıkama adımını iki kez tekrarlayın.
- Son yıkanmış peleti taze GMM besiyerinde resüspande edin ve nihai optik yoğunluğu OD600 = 5.0 gibi yüksek konsantrasyonlu bir değere ayarlayın.
- Steril pens kullanarak, izle aşındırılmış (track-etched) 0.4 µm gözenek boyutunda polikarbonat membran içeren steril bir membran kuyucuk inserti alın. Insert gövdesini, üst flanşları orta çentik konumlarına oturacak şekilde, dolu 24 kuyucuklu plaka bölmesine yavaşça indirin.
- OD600 = 5.0 değerindeki konsantre C. glabrata kültüründen tam olarak 750 µL'yi üst luminal insert bölmesine dağıtın.
NOT: Membran bariyeri boyunca yaklaşık 1:50 (C. albicans ve C. glabrata) oranında bir başlangıç hücre oranının korunması, lokal geri besleme artefaktlarını önlerken sinyal ligandlarının yeterli düzeyde birikmesini sağlar.
- İnkübasyon ve Görüntüleme
- Hazırlanan membran insertli kuyucuk plaka düzeneğinin üzerini kapatın ve statik olarak veya hafif orbital çalkalama (30 rpm) ile 37 °C'de tam olarak 3 saat boyunca inkübe edin.
- İnkübasyonun ardından, steril pens kullanarak üst luminal inserti her bir kuyucuktan dikkatlice kaldırıp çıkarın. Insertleri biyotehlike atık kutusuna atın.
NOT: Yüksek çözünürlüklü mikroskobik tarama sırasında refraktif gölgeleri, ışık saçılım modellerini ve arka plan ızgara artefaktlarını ortadan kaldırmak için görüntülemeden önce üst insert membranının tamamen çıkarılması gerekir. - Morfolojik değerlendirme için 24 kuyucuklu plakayı ters mikroskop tablasına yerleştirin. Bu çalışmada, DIC filtre seti ile birlikte 10x/0.30NA, 20x/0.50NA veya ekstra uzun çalışma mesafeli 40x/0.60NA objektifli bir ters mikroskop kullanılmıştır.
5. Yüksek çözünürlüklü mikroskopi ve dijital görüntü analizi
- Dijital görüntüleme
- Hücre dağılımının homojen olduğunu doğrulamak ve herhangi bir bölgesel izleme hatasını veya anormal hücre kümelenmesini belirlemek için kuyucuk tabanlarını düşük güçlü 10x objektif lens kullanarak tarayın.
- Kalibre edilmiş 20x objektif lens kullanarak en az 10 farklı görüş alanı yakalayın. Bu görüntüler, standart filament sayılarını ve popülasyon dağılımlarını takip etmek için temel veri setini oluşturur.
- Hassas fenotipik analiz ve hücre sınırlarının detaylı ölçümleri için, 40x ekstra uzun çalışma mesafeli objektif lens konfigürasyonu altında mikrograflar çekin. Tüm ham görüntü dosyalarını kaydedin.
- Kantitatif fenotipleme iş akışı (Fiji)
- Başlatın Fiji (versiyon 1.54p veya daha yükseği) işleme yazılımı. Şuraya giderek hedef mikrografı açın: Dosya > Açık veya dosyayı doğrudan şuraya sürükleyerek Fiji kontrol paneli
- Hif Uzunluğu Takibi (L): Ana ekrandaki çizgi seçim simgesine sağ tıklayın Fiji araç çubuğuna tıklayın ve şunları seçin Segmentli Çizgi Aracı açılır menüden. İmleci, hareketli filamentin ana maya hücresi duvar sınırından çıktığı tam bağlantı noktasına konumlandırın.
- Hifanın merkezi boylamsal ekseni boyunca iz sürmek için sürekli sol tıklayın; herhangi bir kavis veya bükülmeyi ayarlamak için çapa noktaları yerleştirin ve çizgiyi kesin apikal ucunda sonlandırın. Şuraya tıklayın Ölçün uzunluğu mikrometre cinsinden kaydetmek için (µm). Basın Ctrl+M (Windows) veya Cmd+M (Mac OS) toplam uzunluğu (L) mikrometre cinsinden kaydetmek için (µm) Results penceresi içerisinde.
- Aynı filamentin mükerrer ölçülmesini önlemek için, tamamlanan her bir hücreyi işaretlemek amacıyla yerleşik 'Fırça Aracı'nı (Brush Tool) kullanın.
- Ana maya hücresi profilleme: Daha önce izlenen hifal filamente karşılık gelen, ekli ana maya hücresi gövdesini bulun. Şunu kullanın: Segmentli Çizgi Aracı hücre gövdesinin maksimum uzun eksenini ölçmek için bu eksen boyunca düz bir çizgi çizmek (değişken 'a' olarak tanımlanan majör eksen) ve şu işlemi gerçekleştirmek için Ölçmek Lütfen çevrilecek kaynak metni sağlayın. Metni aldığımda, belirttiğiniz akademik standartlar ve bilimsel çeviri kuralları çerçevesinde profesyonel Türkçe çevirisini gerçekleştireceğim.
- Hücre gövdesinin en geniş transvers açıklığı boyunca, ana eksene tam dik olacak şekilde ikincil bir hat çizerek buna karşılık gelen dik çapraz ekseni (değişken 'b' olarak tanımlanan minör eksen) ölçün ve şu işlemi gerçekleştirin: Ölçün komut
- Ana maya hücresinin toplam hacmini (kübik mikrometre cinsinden ifade edilen CV, µm3‘a’ ve ‘b’ için kaydedilen değişkenleri kullanarak, bir prolats sferoid için standart geometrik model uygulandığında: CV = 4/3 π ab2.
- Hif Yapısal Kalınlığı (d): Şunu seçin Segmentli Çizgi AracıDış duvarlar arası mesafeyi ölçün. yani uzunluk eksenine dik çizilen çizgi. Doğal yapısal varyasyonları hesaba katmak için bu ölçümleri filamentin uzunluğu boyunca eşit aralıklı üç ayrı noktadan yapın ve her bir ölçümü kaydedin. aracılığıyla belirtili tanımlık (the) Ölçün Lütfen çevrilmesini istediğiniz kaynak metni sağlayın.
- Doğru bir ortalama kalınlık değerini (d) belirlemek için bu üç farklı veri noktasının aritmetik ortalamasını hesaplayın. Yapısal değişken yarıçapı (r = d/2) belirlemek için hesaplanan bu ortalama çap değerini ikiye bölün.
- Hif filamentinin toplam hacmini hesaplayın (HV, şurada ifade edilir: µm3) filamanı dallanmamış, düzgün geometrik bir silindir olarak kabul ederek; takip edilen filaman uzunluğunu (L) ve türetilen yapısal yarıçapı (r) şu hesaplama modeline uygulayın: HV = π Lütfen çevirmemi istediğiniz metni sağlayın.2 L.
6. İstatistiksel tasarım
- Biyolojik tekrarlar
- Tüm bireysel test düzeneklerini, taze ve ayrı hazırlanmış başlangıç kültürleri kullanarak en az üç bağımsız biyolojik çalışma boyunca gerçekleştirin.
- Her biyolojik çalışma içinde, lokalize kuyu kenarı etkilerini veya pipetleme varyasyonlarını hesaba katmak için her koşul başına en az iki özdeş teknik kuyu atayın.
- Deneysel birimin tanımlanması: İstatistiki geçerliliği sağlamak ve artefaktlardan kaçınmak için her deney için en az üç teknik tekrar dahil edin. Tek bir kuyu içinde ölçülen bireysel hücreler teknik alt örnekleri oluşturur; benzer şekilde, bu tür üç kuyu üç teknik tekrara karşılık gelir. Benzer şekilde, her örnek için üç biyolojik tekrar (bağımsız deney) önerilir (N = 3).
- Bir biyolojik çalışma içindeki her farklı koşul için, birden fazla görüş alanı boyunca rastgele 50 ile 100 arasında bireysel hücre ölçün. Her biyolojik tekrar için, bu hücre ölçümlerinin ortalamasını veya medyan değerini hesaplayın. Sonraki tüm karşılaştırmalı istatistiksel testler için biyolojik tekrarlardan elde edilen bu ortalama veya medyan değerlerini kullanın.
- Dağılım profilleme ve hipotez testi
- Parametrik yöntemleri (örneğin, ortalamaların karşılaştırılması) uygulamadan önce, biyolojik tekrar veri setlerini normallik değerlendirmesi için Shapiro-Wilk veya D’Agostino-Pearson normallik testlerine tabi tutun.
- İki grup karşılaştırmaları: Tek bir test grubunu doğrudan tek bir kontrol arka planıyla karşılaştırırken (örneğin, saf besiyerinde vahşi tip C. albicans büyümesine karşı izole C. glabrata CFS içindeki büyüme), veri seti normal dağılıma uyduğu sürece eşleşmemiş, çift kuyruklu Student t-testi uygulayın.
- Veriler normal dağılımdan önemli ölçüde sapıyorsa, sıralanmış verilerin medyan değerlerini karşılaştıran ve verilerin mutlak değerlerine bağlı olmayan Mann-Whitney U testi (Wilcoxon sıra toplamı testi) gibi parametrik olmayan bir alternatife geçin. Parametrik olmayan testlerin aykırı değerlere karşı tarafsız olduğu da bilinmektedir.
- Çoklu grup değerlendirmeleri: Üç veya daha fazla genetik hattı veya tedavi kombinasyonunu eş zamanlı olarak değerlendirirken (örneğin, MATa/a, MATα/α ve MATa/α suşları arasındaki morfolojik varyasyonları takip ederken), standart tek yönlü varyans analizi (ANOVA) gerçekleştirin ve ardından çoklu ikili karşılaştırmalar için Tukey post-hoc testini uygulayın. Normallik testi ihlal edilirse, parametrik çerçeveyi parametrik olmayan Kruskal-Wallis testi ve ardından Dunn post-hoc çoklu karşılaştırma analizi ile değiştirin.
- Grafiksel temsil ve veri görselleştirme: Tüm istatistiksel analizleri ve grafiksel temsilleri istatistiksel ve grafik yazılımları kullanarak gerçekleştirin.
NOT: İstatistiki analizleri gerçekleştirmek ve grafiksel temsiller hazırlamak için eşdeğer yazılımlar kullanılabilir. Membran insert kuyu plakası ve CFS deneylerinden elde edilen veriler; medyanı (orta çizgi) ve %95 GA'yı (bu çalışmada kullanılmıştır) veya medyanı (orta çizgi) ile birinci ve üçüncü kuartilleri (sırasıyla üst ve alt çizgiler) temsil eden sütun-dağılım grafikleri, jitter-violin grafikleri veya jitter kutu grafikleri kullanılarak temsil edilebilir. - Resmi istatistiksel anlamlılık eşiğini p < 0,05 alfa düzeyinde belirleyin. Oluşturulan tüm veri şekilleri ve tablolarında geleneksel notasyon konfigürasyonlarını koruyun. Örneğin: ns: p > 0,05; *: p < 0,05; **: p < 0,01; ***: p < 0,001; ****: p < 0,0001.
Sonuçlar
Türler arası etkileşimleri incelemek için temassız ko-kültür analizleri
Çözünür, düşük bolluktaki hücre dışı sinyal molekülleri, karma mikrobiyal birlikte yaşam sırasında genellikle temel iletişim olaylarına aracılık eder. Bu dinamikler, hücreler arası doğrudan fiziksel teması önleyerek C. albicans ve C. glabrata arasındaki etkileşim modellerini analiz etmek için tasarlanmış iki temassız hücre tabanlı düzenek kullanılarak değerlendirilmiştir. İlk konfigürasyonda, iki popülasyonun inert, 0,4 µm gözenekli bir polikarbonat membran ile fiziksel olarak ayrıldığı ve salgılanan moleküllerin bariyer üzerinden engelsiz çift yönlü difüzyonuna izin verilen entegre membran insertli kuyucuk plak kültür sistemi kullanılmıştır. İkinci düzenekte ise, stasyoner fazdaki C. glabrata kültürlerinden elde edilen hücre içermeyen süpernatant (CgCFS) içeren mikrotiter plaklarda doğrudan kültüre edilen C. albicans maya hücrelerinin büyümesi izlenmiştir.
Önceki taramalarla30 tutarlı olarak, yaban tip heterozigot diploid C. albicans hücreleri (SC5314), membran insert bariyeri ile ayrılmış C. glabrata hücrelerine veya filtrelenmiş CgCFS'ye yanıt olarak kolaylıkla gerçek hifler geliştirdi. Buna karşılık, saf negatif kontrol ortamında (GMM veya YPD) tutulan hücreler ağırlıklı olarak tomurcuklanan maya ve psödohifal formda kaldı (Şekil 2A). Karşılaştırmalı analizler, iki assay düzeneği arasında tutarlılık olduğunu göstermiştir. Her iki assay de filament uzunluğu, hacmi ve kalınlığı dahil olmak üzere tüm yapısal metriklerde karşılaştırılabilir değerler vermiştir (Şekil 2). Morfolojik parametrelerdeki fark, uygun istatistiksel testlerden elde edilen p-değerinin ve ardından yapılan çoklu karşılaştırmalar için post-hoc testlerin 0,05 kriterini karşılaması durumunda anlamlı olarak değerlendirilmiştir. Bu gözlemler, C. albicans hücrelerinin, membran insert kuyucuk plaka düzeneğindeki C. glabrata hücreleri tarafından indüklenen (39,66 µm ± 6,81 µm) veya filtrelenmiş CgCFS'ye maruz kaldıklarındaki (37,13 µm ± 6,50 µm; Şekil 2B) gerçek hif uzunlukları arasında anlamlı bir fark olmadığını göstermiştir. Benzer şekilde, membran insert kuyucuk plaka sistemindeki bu indüklenmiş filamentlerin hacimleri (112,10 µm3± 22,59 µm3), CgCFS kondisyonlu ortamdakilerden (109,78 µm3± 34,69 µm3; Şekil 2C) anlamlı düzeyde farklı değildi. Ayrıca, filament çapı ölçümleri, ortalama hif kalınlığının iki düzenek arasında tutarlı kaldığını doğrulamış olup, membran insert kuyucuk plaka konfigürasyonu için 1,89 ± 0,10 µm ve CgCFS uygulaması için 1,92 µm ± 0,23 µm değerleri elde edilmiştir (Şekil 2D).
Ploidi durumları ve çiftleşme tipi konfigürasyonları in vitro morfolojik boyutları değiştirir
Ploidi seviyelerinin ve çiftleşme lokusu mimarilerinin dimorfik geçişleri yönlendirmedeki rolleri, farklı mantar model sistemlerinde ortaya konmuştur. Burada, bir dizi haploid (MATa veya MATα) ve diploid (MATa/a, MATα/α veya MATa/α) C. albicans suşunda filamentasyon metriklerini, özellikle hif uzunluğunu, yapısal hacmi, kalınlığı ve bunlarla ilişkili ana maya hücresi hacmini belirlemek için analitik takip hattı uygulanmıştır.
Yapısal profilleme, indüktif CgCFS sekretomuna veya pozitif serum kontrolüne maruz kalındığında, homozigot diploid alfa suşunun (MATα/α), homozigot diploid MATa/a suşu ile karşılaştırıldığında anlamlı derecede daha uzun eksenlere (45.56 µm ± 9.24 µm ve 46.62 µm ± 9.07 µm) ve daha büyük hacme (125.24 µm3 ± 39.94 µm3 ve 119.45 µm3 ± 37.32 µm3) sahip filamentler oluşturduğunu ortaya koymuştur (Şekil 3A,C). Standart klinik C. albicans izolatları ağırlıklı olarak heterozigot diploidler şeklinde bulunsa da, referans MATa/α suşu, indüksiyon sonrası (özellikle serumla) MATa/a suşuna kıyasla daha uzun filamentler ve daha büyük hacimler sergilemiştir. Bununla birlikte, bu değerler homozigot MATα/α suşundan anlamlı derecede düşük kalmıştır (Şekil 3B,D).
Eş zamanlı olarak, haploit suşlar ters bir örüntü sergilemiş; haploit MATa suşu, her iki indüksiyon koşulu altında haploit MATα suşuna kıyasla hif uzunluğunda anlamlı bir artış göstermiştir (CgCFS: 22.06 µm ± 5.41 µm'ye karşı 17.58 µm ± 4.12 µm; Serum: 23.71 µm ± 6.59 µm'ye karşı 21.00 µm ± 5.29 µm; Şekil 4A). İlginç bir şekilde, haploit arka plandaki bu uzunluk artışı, hif hacmindeki artışa (38.84 µm3 ± 19.58 µm3'e karşı 34.25 µm3 ± 19.62 µm3) yalnızca CgCFS yanıtı olarak yansımıştır (Şekil 4B). Bu ilk in vitro ölçümler, ploidi durumları ve çiftleşme tipi lokus konfigürasyonları arasında karmaşık bir etkileşim olduğunu göstermekte olup, MATa ve MATα lokuslarının filaman oluşum dinamiklerine muhtemelen farklı şekilde katkıda bulunduğunu düşündürmektedir.
Birleştirilmiş veri setleri genelinde bu yapısal metrikler arasındaki istatistiksel ilişkileri incelemek için, test edilen tüm ploidi ve çiftleşme tipi varyantlarını kapsayan Spearman sıra korelasyonu (ρ) ve Pearson doğrusal regresyon (R2) analizleri gerçekleştirilmiştir. Analiz edilen tüm çiftlerde pozitif korelasyonlar gözlemlenmiştir: hif uzunluğu ile hif hacmi, hif uzunluğu ile hif kalınlığı, hif uzunluğu ile ana hücre hacmi ve toplam hif hacmi ile ana maya hücresi hacmi (Şekil 5, Ek Tablo 1 ve Ek Tablo 2).
En güçlü ilişki, hif uzunluğu ile hesaplanan hif hacmi arasında gözlemlendi (ρ = 0.91; Şekil 5A). Aksine, en zayıf korelasyon ana maya hücresinin başlangıç hacmi ile ortaya çıkan hif hacmi arasındaydı (ρ = 0.63; Şekil 5C). Ayrıca, hif kalınlığı hif uzunluğu ile, hif hacminin olduğu kadar güçlü bir korelasyon göstermedi (Şekil 5A,D). Ana hücre hacmi, hif uzunluğu ve hif kalınlığının korelasyonları arasında istatistiksel olarak anlamlı farklar saptanmadı (Şekil 5B,D). Bu geometrik dağılımlar, daha büyük bir başlangıç ana maya hücresi hacminin, daha uzun hifler veya daha yüksek hacimle sonuçlanması gerekmediğini göstermektedir.
Özetle, bu sonuçlar, herhangi bir fiziksel temas olmaksızın C. albicans'taki morfogenetik varyasyonların görselleştirilmesi ve miktarının belirlenmesi için hem membran insert kuyucuklu plakaların hem de CFS tabanlı analizlerin yararlılığını göstermektedir. Bu protokol ile elde edilen veriler, farklı ploidi arka planları ve çiftleşme tipi konfigürasyonları genelinde farklı morfolojik özellikler ortaya koymaktadır. Bu temassız analiz düzenekleri, çeşitli mikrobiyal kombinasyonlar genelindeki türler arası sinyalizasyon dinamiklerini araştırmak için uyarlanabilecek esnek ve ölçeklenebilir bir metodoloji sunmaktadır.
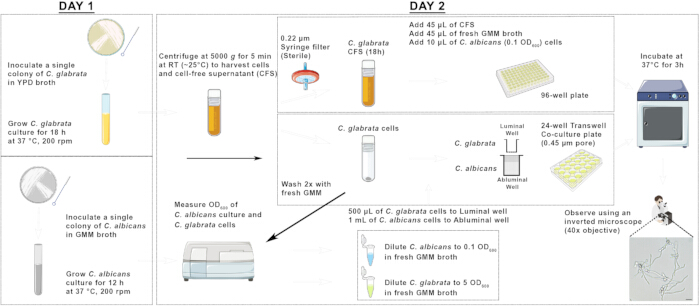
Şekil 1: Candida türleri ile membran insert kuyucuklu plaka kokültürü ve CFS tabanlı hifal indüksiyon analizlerinin şematik gösterimi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
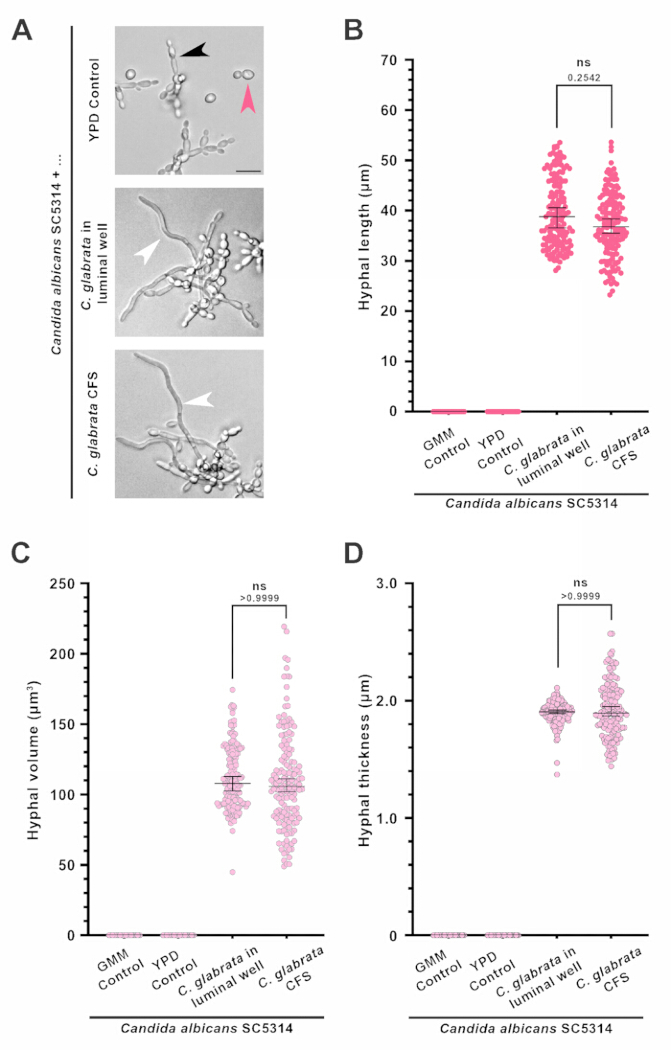
Şekil 2: Membran insert kuyucuk plakası ile CFS tabanlı temassız analizler arasında gözlemlenen hifal morfolojilerin karşılaştırılması. (A) C. albicans'ın YPD'ye (kontrol), membran insert kuyucuk plakası düzeni içindeki C. glabrata'ya veya C. glabrata hücre dışı süpernatant (CFS) ile koşullandırılmış ortama verdiği morfolojik yanıtı betimleyen temsili parlak alan mikrografları. Pembe, siyah ve beyaz ok başları sırasıyla mayayı, psödohifleri ve gerçek hifleri göstermektedir. Ölçek çubuğu, 10 µm. Membran insert kuyucuk plakası düzenindeki C. glabrata hücrelerine veya C. glabrata CFS'ye yanıt olarak gözlemlenen heterozigot diploid bir C. albicans suşunun (SC5314) hifal uzunlukları (B), hifal hacimleri (C) ve hifal kalınlığı (D). Veriler, n = 50 hücre ile üç bağımsız biyolojik deneyden elde edilen medyan ± %95 güven aralıklarını temsil etmektedir. ns, anlamlı değil: p > 0,05. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
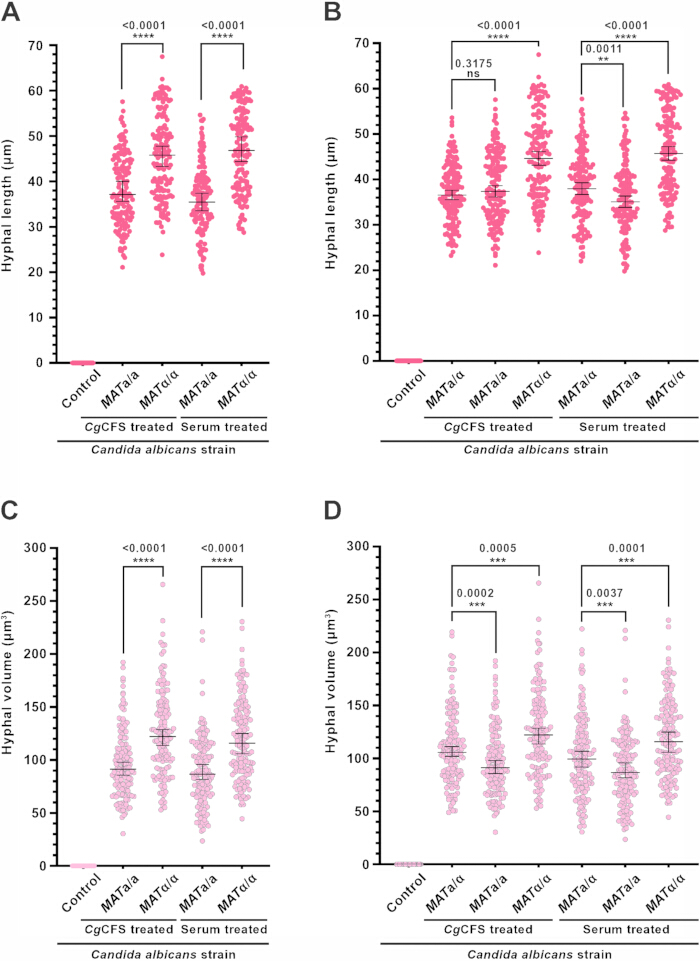
Şekil 3: Çift takımlı C. albicans'ta çiftleşme tipi ve zigozite, hifal morfoloji üzerinde önemli etkilere sahiptir. Belirtilen indükleyici moleküle yanıt olarak, C. albicans'ın homozigot diploitleri (A) ve hetero- ve homozigot diploitleri (B) arasındaki karşılaştırmalı hifal uzunluklarını gösteren grafikler. Benzer şekilde, bahsedilen indükleyici moleküllere yanıt olarak, homozigot diploitler (C) ve hetero- ve homozigot diploitler (D) arasındaki karşılaştırmalı hifal hacimleri gösterilmiştir. Kontrol: YPD, hif indüklemeyen ortam kontrolü. Veriler, n = 50 hücre ile üç bağımsız biyolojik deneyden elde edilen medyan ± %95 güven aralıklarını temsil etmektedir. Grafiğin üst kısmında belirtilen sayılar, Wilcoxon sıra toplam testi karşılaştırmaları ile belirlenen p-değerleridir. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001, istatistiksel olarak anlamlı; ns, anlamlı değil: p > 0.05. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
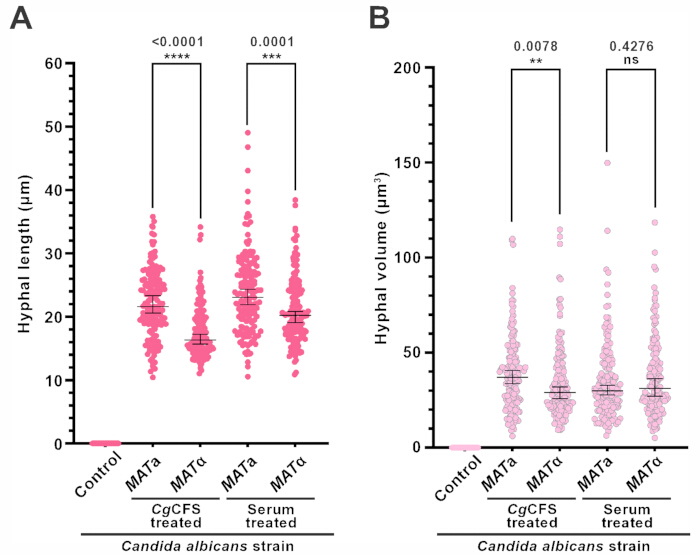
Şekil 4: Farklı moleküler indükleyiciere yanıt olarak haploid C. albicans hücrelerindeki hif karakteristikleri. Grafikler, belirtilen indükleyiciye yanıt olarak haploid C. albicans suşlarındaki hif uzunluklarını (A) ve hif hacimlerini (B) göstermektedir. Kontrol: YPD, hif oluşumunu indüklemeyen besiyeri kontrolü. Veriler, n = 50 hücre ile üç bağımsız biyolojik deneyden elde edilen medyan ± %95 güven aralıklarını temsil etmektedir. Belirtilen sayılar, Wilcoxon sıra toplam testi ile belirlenen p-değerlerini ifade eder. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001, istatistiksel olarak anlamlı; ns, anlamlı değil: p > 0.05. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
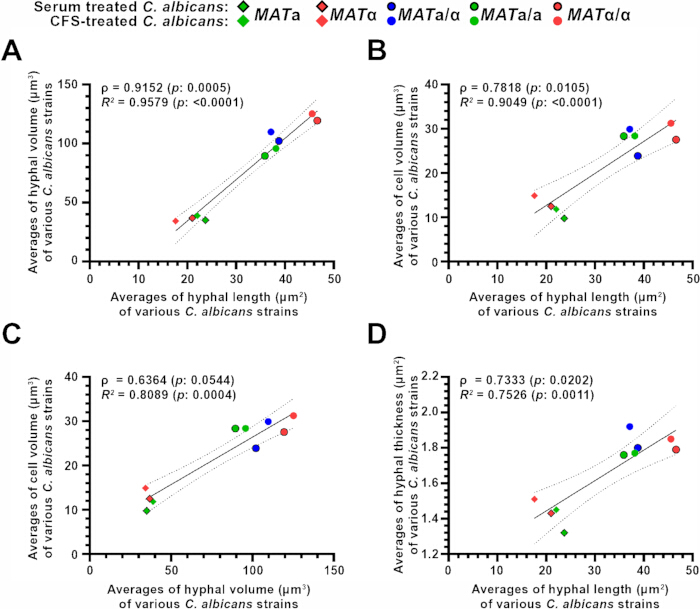
Şekil 5: C. albicans ploiditesi ile ilişkili morfolojik parametreler arasındaki korelasyon. Grafikler, bu çalışmada kullanılan morfolojik parametreler arasındaki Spearman korelasyonunu ve doğrusal regresyonu göstermektedir: hif hacmi ve hif uzunluğu (A), hücre hacmi ve hif uzunluğu (B), hücre hacmi ve hif hacmi (C), hif kalınlığı ve hif uzunluğu (D). ρ: Spearman korelasyon katsayısı; R2: doğrusal regresyon analizinden elde edilen belirleme katsayısı; p: p-değeri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Suş | Tür | Ploidite | Genotip | Kaynak |
| CBS138 | Candida glabrata | Haploid (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | Diploid (2n) | Heterozigot (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Diploid (2n) | Homozigot (MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Diploid (2n) | Homozigot (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Haploid (1n) | Homozigot (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Haploid (1n) | Homozigot (MATα); his4 ura3Δ::HIS4 |
Tablo 1: Bu çalışmada kullanılan Candida albicans ve Candida glabrata suşları. Tablo, temassız membran insert kuyucuk plaka ko-kültürü ve Hücresiz Süpernatant (CFS) tabanlı analizlerde değerlendirilen fungal suşların tanımlamalarını, açık genotiplerini, ploidi durumlarını ve çiftleşme tipi zigozitelerini özetlemektedir.
Ek Tablo 1: Çeşitli C. albicans morfolojik parametreleri üzerinde gerçekleştirilen istatistiksel analiz verileri. Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 2: Bu çalışmada değerlendirilen çeşitli C. albicans morfolojik parametrelerinin tüm biyolojik tekrarlarının ham değerleri.Bu dosyayı indirmek için lütfen buraya tıklayınız.
Ek Dosya 1: Bu çalışmada kullanılan ortamların listesi ve bileşimleri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Membran eklemeli kuyucuk plakası ve CFS tabanlı analiz kullanılan önceki bir rapor, C. albicans'ın C. glabrata hücrelerine veya bunların CFS'sine yanıt olarak hifler geliştirdiğini göstermiştir. Ancak bu yanıt, Saccharomyces cerevisiae ve Candida dubliniensis gibi diğer mayalar tarafından indüklenmemiştir30. Ayrıca, bu hifal yanıt yalnızca C. albicans SC5314 laboratuvar referans suşu ile sınırlı kalmamış, klinik izolat WUM5A dahil olmak üzere diğer genomik arka planlarda da gerçekleşmiştir30. Bu protokolde, üç morfolojik metriği (hifal uzunluk, hifal hacim ve hifal kalınlık) nicelleştirmek için bu bulgular üzerine standartlaştırılmış bir iş akışı oluşturulmuştur. Dahası, bu morfolojik faktörler, ploidi ve çiftleşme tipi lokus durumundaki varyasyonların, salgılanan bir indükleyici moleküle yanıt olarak C. albicans'ın morfolojik özelliklerini nasıl etkilediğini değerlendirmek için kullanılmıştır.
Burada açıklanan temassız metodolojiler, türler arası çözünür sinyal moleküllerinin morfometrik sonuçlarını görselleştirmek ve analiz etmek için basit bir deneysel çerçeve sunmaktadır. Membran insert kuyucuk plakası, aktif kültürler arasında çift yönlü difüzyona izin verirken, CFS tabanlı analiz, gerekli indüksiyon bileşenleri hedef kültürden bağımsız olarak toplandığı için ölçeklenebilir bir format sağlar. Analiz tutarlılığı için membran insert kuyucuk plakası düzeneğinde yaklaşık 1:50 oranının (C. albicans ile C. glabrata arasında) korunması gerekir. Bu konsantrasyon gradyanı, C. albicans filamentasyon kinetiğini baskılayabilen farnesol gibi endojen quorum-sensing inhibitörlerinin birikme eşiklerinin altında kalarak, çözünür indüksiyon moleküllerinin membran bariyeri boyunca yeterli akışını sağlar31,32. Benzer şekilde, CFS tabanlı analizde kritik bir adım, C. glabrata kaynak kültürünün homojen bir şekilde geç stasyoner büyüme evresine ulaşması için gereken 18 saatlik inkübasyon süresidir. C. glabrata kültürü için inkübasyon süresi 12 saatten az veya 24 saatten fazla olduğunda, toplanan CFS'nin burada incelenen spesifik indükleyici molekülün optimum konsantrasyonuna sahip olma olasılığı azalır ve bu da suboptimal hifa indüksiyonuna yol açar. CFS'nin toplanacağı uygun büyüme evresi veya kültürlerin oranı, her yeni deneysel hedef ve/veya yeni mikrobiyal tür kombinasyonları için standart hale getirilmelidir.
Farklı laboratuvar ortamlarında analiz tekrarlanabilirliğini maximize etmek için aşağıdaki temel prosedür iyileştirmeleri önerilmektedir. Tüm diploid C. albicans hatlarının gece boyu kültürü için Glukoz Minimum Besiyeri (GMM) kullanımı önerilir. GMM kullanımı, besin açısından zengin YPD besiyerinde sıklıkla gözlenen arka plan oto-filamentasyonunu baskılar. Altındaki mekanizma henüz net olmamasına rağmen, benzer oto-filamentasyonlar diğer çalışmalarda da gözlemlenmiştir33. Yüksek büyütmeli parlak alan mikroskobisi sırasında girişime neden olabilecek ışık saçılmasını ve optik aberasyonları ortadan kaldırmak için, görüntüleme öncesinde polikarbonat membran insertin tamamen fiziksel olarak çıkarılması da önerilmektedir.
Bu temassız konfigürasyonlar, çözünür sinyal bileşenlerinin rollerinin ayrıştırılmasına yardımcı olsa da, beraberinde belirli deneysel zorluklar getirir. Örneğin, temassız analizler, hatalı tutma nedeniyle membran yırtılması ve dolayısıyla mikrobiyal geçiş gibi küçük risklere karşı hassastır. Bu nedenle, örnekleme sırasında pipet uçlarının insertlerin hazne duvarlarına değmesine dikkat edilmeli ve membrana temas etmemesi sağlanmalıdır. Ayrıca, yanlış (daha geniş) gözenek boyutları nedeniyle bölmeler arasında fiziksel çapraz kontaminasyon meydana gelebilir; bu durum, uygun membran gözenek boyutuna sahip insertler kullanılarak kolayca giderilebilir. Mantar aşırı büyümesi veya yoğun biyofilm birikimi gözenekli membranı kapatabilir. Bu sorun, başlangıç inokülasyonlarının OD600 = 0.1 ile sınırlandırılması ve 12 h'den fazla inkübe edilmemesiyle çözülür. Ek olarak, mikroplar cihaz kuyucukları içinde homojen bir şekilde dağılmayabilir; sıklıkla membranın yakınında kümelenme veya tutunma gösterebilirler, bu da optik yoğunluk ölçümlerinde beklenmedik sapmalara yol açabilir. Dahası, bu sistemler iki popülasyonu fiziksel olarak ayırdığı için, doğrudan fiziksel hücre-hücre temasına dayalı etkileşimleri kopyalayamaz veya değerlendiremezler. Örneğin; karma türlü biyofilm olgunlaşması, mekanik ko-agregasyon veya yüzeye bağlı hücre duvarı adezinleri tarafından yönlendirilen sinyalleme gibi süreçler buna örnektir. Bu plaka tabanlı analizler, erken filamanlaşma kinetiğinin (3 h'de) etkili bir bitiş noktası anlık görüntüsünü sunsa da, uzun vadeli büyüme dinamiklerini veya uzamsal davranışı yakalamazlar. Uzatılmış süreler boyunca sürekli gerçek zamanlı takip gerektiren araştırmacılar için, özel mikroakışkan perfüzyon kanalları veya otomatik canlı hücre görüntüleme odaları daha uygun bir alternatif olabilir.
Hücresel geometri, yüzey alanı-hacim (SA/V) oranının besin edinimi ve hücre içi taşıma için temel bir itici güç olmasıyla metabolik verimliliğe temelden bağlıdır. Dimorfik ve filamanöz funguslarda, uzamış bir hifli morfotipe geçiş, optimize edilmiş bir SA/V oranını korumak için yapısal bir adaptasyon görevi görür. Bu durum, hif uçlarına yönelmiş metabolik süreçleri sürdürürken, genişletilmiş filaman duvarı boyunca dağıtılmış besin emilimine olanak tanır34,35,36,37. Ancak çalışmamız, morfometrik ölçeklendirmenin farklı ploidi durumları ve çiftleşme tipi lokus konfigürasyonları genelinde tekdüze orantılı olmadığını göstermektedir.
Oluşturulan morfometrik veri setleri aracılığıyla bu takip protokolü, ploidite ile ilişkili net yapısal ölçeklenme eğilimlerini ortaya koymakta olup; haploid hatlar, tüm geometrik metriklerde diploid suşlara kıyasla tutarlı bir şekilde daha küçük mutlak değerler sergilemektedir (Şekil 5). Diploid arka plan içerisinde, homozigot MATα/α yapılandırması, ...'ya kıyasla gelişmiş filamentasyon kinetiği (uzunluk ve hacim) sergilemiştir MATa/a veya MAT (Minimum Aktif Konsantrasyon)a/α bu koşullar altındaki suşlar in vitro koşullar. Artmış filamentasyonun sıklıkla artan penetrasyon kapasitesi ile ilişkili olduğu göz önüne alındığında, şunların klinik izolatlarının neden C. albicans ağırlıklı olarak heterozigot diploidler şeklinde izole edilirler (MATa/α). İmmünokompetan bir konakçıda, heterozigot durumun uzun süreli kommensal kolonizasyon için daha geniş bir uygunluk avantajı sağlaması mümkündür. Diğer bir deyişle, şunların yapısal özellikleri... MATa/α morfotipler, konakçı bağışıklık gözetimine karşı hayatta kalma konusunda optimize edilmiştir. Bu nedenle, gelecekteki araştırmalar, farklı seçici baskılar altında farklı çiftleşme tipi homozigotların karşılaştırmalı uygunluğunu sistematik olarak değerlendirmek için bu standartlaştırılmış ko-kültür sistemlerinden yararlanmalıdır.
Önceki çalışmalar, koful morfolojisinin, bölünme-birleşme dinamiklerinin ve yapısal genişlemenin, uzayan fungal filamentlerin iç hacminin ve turgor basıncının yönetilmesinde önemli roller oynadığını belgelemiştir. Örneğin, pirinç blast patojeni Magnaporthe oryzae'de, ince vejetatif hifler ile yumrulu istilacı yapılar arasındaki belirgin geçişler, koful organizasyonundaki değişikliklerle sıkı bir şekilde koordine edilmektedir38,39,40. Ancak, mevcut protokol C. albicans filamentasyonu sırasında koful dinamiklerini doğrudan izlememiştir; bu iç organel değişikliklerinin toplam yapısal hacme göre takip edilmesi, gelecekteki araştırmalar için bilgilendirici bir yol sunmaktadır. Ek olarak, fungal kaynaklı belirli sekretom bileşenlerinin, serum gibi konakçı kaynaklı kimyasal indükleyicilerden farklı morfolojik ölçekleme kinetiklerine neden olduğunu belirlemek için daha fazla araştırma yapılması gerekmektedir.
Bu protokolde ayrıntıları verilen temassız ko-kültür yöntemleri, fırsatçı bakteriyel popülasyonlar ile dimorfik funguslar arasındaki sinyalizasyon dinamikleri gibi türler arası ve alemler arası etkileşimlerin araştırılmasına uyarlanabilir. Ayrıca, bu 96 kuyucuklu ve 24 kuyucuklu formatlar ölçeklendirilebilir olduğu için, bu kantitatif platform kimyasal taramalar için kullanılabilir. Bunun örnekleri arasında, temel hücre canlılığını doğrudan etkilemeden, sekretomla stimüle edilen filamentasyon yolaklarını seçici olarak bozacak küçük moleküllü inhibitörlerin veya yeni antifungal bileşiklerin tanımlanması yer almaktadır.
Açıklamalar
Yazarlar, herhangi bir rakip veya çatışan çıkar beyan etmemektedir.
Teşekkürler
Bu çalışma, RNP'ye verilen DBT-Wellcome Trust India Alliance Intermediate Fellowship (IA/I/19/1/504294) tarafından desteklenmiştir. KBSS, Ahmedabad University Special Research Grant (AU/SRG/SAS/20-21/07_KS_03.25) ve SERB-Core Research Grant (URBSASE23A6/SERB/23-24/KS_02.27) tarafından desteklenmiştir. Şekil 1'de kullanılan simgeler, CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/) altında lisanslanmış Servier Medical Art (https://smart.servier.com/) ve BioArt Source, NIAID, NIH'den uyarlanmıştır.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.22 μm PES şırınga filtresi | Millipore (Merck) | SLGPR33RS | |
| Agar agar | HiMedia | GRM666 | |
| Glukoz | HiMedia | GRM016 | |
| Hücre kültürü insertli (0.4 μm) Nunc 24 kuyucuklu taşıyıcı plaka | Thermo Scientific | 141002 | |
| Nunc BioLite 96 kuyucuklu çoklu kap, hücre kültürü işlem görmüş, düz tabanlı | Thermo Scientific | 130188 | |
| Proteoz pepton | HiMedia | RM005 | |
| Uridin | Sigma | U6381 | |
| Maya ekstraktı | HiMedia | RM027 | |
| Maya Azot Bazı, amonyum sülfatlı, amino asitsiz | HiMedia | M878 |
Kaynaklar
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Yeniden basım ve izinler
