Entegre metabolomik, transkriptomik, tek hücreli ve fonksiyonel analizler, SHMT2'nin akciğer adenokarsinomunda SGOC metabolik yeniden programlanmasının, agresif davranışın ve öngörülen immünoterapi yanıtındaki azalmanın bir biyobelirteci olduğunu belirlemektedir.
Araştırma makalesi
SHMT2: Agresif Akciğer Adenokarsinomunun Metabolik ve İmmün Bir Biyobelirteci
* These authors contributed equally
Bu makalede
Özet
Özet
Serin/glisin-tek karbon (SGOC) metabolizması akciğer adenokarsinomunda (LUAD) sıklıkla bozulur, ancak tümör davranışı ve öngörülen immünoterapi yanıtı ile ilişkisi henüz tam olarak tanımlanmamıştır. 23 çift LUAD ve komşu normal akciğer dokusunun metabolomik profillemesi, dahili ekstraktif elektrospray iyonizasyon kütle spektrometrisi kullanılarak gerçekleştirilmiştir. SHMT2 ekspresyonu, prognoz, diferansiyel ekspresyon gösteren genler ve bağışıklıkla ilgili özellikleri değerlendirmek için The Cancer Genome Atlas LUAD kohortundan (TCGA-LUAD) elde edilen transkriptomik ve klinik veriler analiz edilmiştir. İmmün kontrol noktası blokajına öngörülen yanıt, Tümör İmmün Disfonksiyonu ve Eksklüzyonu (TIDE) ve The Cancer Immunome Atlas (TCIA) kullanılarak değerlendirilmiş ve ilaç duyarlılığı oncoPredict ile çıkarılmıştır. SHMT2'nin hücresel dağılımını incelemek için tek hücre RNA-seq verileri kullanılmıştır. Deneysel doğrulama; kantitatif ters transkripsiyon PCR (RT-qPCR), western blotting, Human Protein Atlas (HPA) immünohistokimyası ve kısa saç tokası RNA (shRNA) aracılı SHMT2 nakavtını takip eden proliferasyon, yara iyileşmesi ve koloni oluşumu analizlerini içermiştir. Metabolomik analiz, glisin, serin ve treonin metabolizmasını LUAD'da belirgin şekilde değişmiş bir yolak olarak tanımlamıştır. SHMT2, LUAD'da yukarı regüle edilmiş olup daha kötü genel sağkalım ve olumsuz klinikopatolojik özelliklerle ilişkilendirilmiştir. SHMT2-yüksek tümörler; hücre döngüsü ve SGOC ile ilgili transkripsiyonel programların zenginleşmesini, daha düşük immün ve stromal skorları ve immünoterapiye karşı azalmış öngörülen yanıtı göstermiştir. Tek hücre analizi, B hücresi popülasyonlarında SHMT2 ekspresyonunun göreceli zenginleşmesini göstermiştir. In vitro ortamda, SHMT2 LUAD hücrelerinde aşırı eksprese edilmiş olup, nakavtı proliferasyonu, migrasyonu ve klonojenik büyümeyi baskılamıştır. Toplu olarak SHMT2, LUAD'da SGOC metabolik yeniden programlama, agresif tümör fenotipleri ve immün-dezavantajlı bir durum ile ilişkilidir ve bir biyobelirteç olarak potansiyel önemini desteklemektedir; terapötik hedefleme için ek farmakolojik ve in vivo doğrulama gereklidir.
Giriş
LUAD, belirgin moleküler heterojenite, erken metastaz eğilimi ve mevcut tedavi stratejilerinin sınırlı kalıcılığı nedeniyle dünya çapında kansere bağlı ölümlerin önde gelen nedenlerinden biri olmaya devam etmektedir1,2. İmmün kontrol noktası inhibitörleri (ICIs), LUAD'ın terapötik manzarasını yeniden şekillendirmiş olsa da, sürdürülebilir klinik fayda hastaların yalnızca bir alt kümesiyle sınırlıdır ve hem birincil hem de kazanılmış direnç sıklıkla gözlemlenmektedir3,4. Hastalar arasındaki bu belirgin değişkenlik, tümör immün mikroçevresini şekillendiren ve immünoterapi yanıtını yöneten biyolojik belirleyicilerin tanımlanmasına duyulan acil ihtiyacın yanı sıra, hasta stratifikasyonunu ve tedavi sonuçlarını iyileştirmek için kullanılabilecek uygulanabilir zayıflıkların belirlenmesinin önemini vurgulamaktadır.
Metabolik yeniden programlama, malign progresyonun merkezi bir özelliğidir5. Metabolik programlar arasında SGOC metabolizması, glikolitik girdileri amino asit metabolizması ve nükleotid sentezi ile birbirine bağlayarak purin/pirimidin üretimi ve metil donörü oluşumu için tek karbonlu birimler sağlar6. Biyokütle üretiminin ötesinde SGOC metabolizması, redoks homeostazına katkıda bulunur ve DNA, RNA ve histon metilasyonunu etkilemek için metiyonin döngüsü ile etkileşime girerek kendisini proliferasyon ve epigenetik düzenlemenin merkezine konumlandırır7,8. Serin hidroksimetiltransferazın mitokondriyal izoformu olan serin hidroksimetiltransferaz 2 (SHMT2), 5,10-metilen-tetrahidrofolat üretirken serini glisine dönüştürür ve SGOC ağı içerisinde mitokondriyal tek karbon kaynağı için ana giriş noktasını oluşturur9. SHMT2, birçok malignitede anormal şekilde yukarı regüle edilmiştir ve artmış proliferasyon, invazyon, terapötik direnç ve oksidatif stres adaptasyonu ile ilişkilendirilmiştir10,11,12,13. SHMT2 ayrıca BRISC kompleksi aracılığıyla inflamatuar sinyalleme ile kesişir, ancak LUAD'da doğrudan SHMT2 tarafından yönlendirilen bir immün mekanizma henüz belirlenmemiştir14,15. Buna bağlı olarak, SHMT2'nin LUAD'da klinik olarak anlamlı bir metabolik fenotipi işaretleyip işaretlemediği ve immün mikroçevre özellikleri ile öngörülen immünoterapi yanıtı ile nasıl ilişkili olduğu entegre bir değerlendirme gerektirmektedir.
Tümör metabolizması ile antitümör immünite arasındaki çift yönlü etkileşim, çağdaş kanser biyolojisinin merkezinde yer almaktadır16. Tümör hücreleri; besin maddelerinin rekabetçi tüketimi, immünomodülatör metabolitlerin birikimi ve immün hücre diferansiyasyonunu ve efektör programlarını yeniden yapılandıran metabolik-epigenetik eşleşme yoluyla immün yetkinliği bozabilmektedir7,16,17. Artmış tek karbon metabolizması, T hücrelerindeki metilasyona bağımlı programları ve metabolik uygunluğu etkileyebilir, ancak bu etkilerin yönü ve büyüklüğü hücre tipine ve besin bağlamına bağlıdır17. Adaptif immün regülasyon T hücrelerinin ötesine de uzanır: B hücreleri, antikor yanıtları, antijen sunumu ve tersiyer lenfoid yapılar (TLS), immünoterapi etkinliği ile ilişkilendirilmiştir18. Bu gözlemler, platformlar arası uyumun tek başına nedenselliği kanıtladığını varsaymadan, metabolik bir adayı bulk-tümör, tek hücre ve fonksiyonel bağlamlar içinde konumlandırabilecek çok katmanlı bir analizi gerekli kılmaktadır.
Hücresel kaynağını veya fenotipik ilgisini belirlemeden değişen metabolitleri tanımlayan yalnızca metabolomik odaklı bir tasarımın ve metabolit değişimlerini doğrudan gözlemlemeden yolak aktivitesini çıkarabilen yalnızca bulk-transkriptomik odaklı bir tasarımın aksine, mevcut iş akışı eşleşmiş doku metabolomiğini, bulk ve tek hücre transkriptomiğini ve in vitro fonksiyonel analizleri entegre etmektedir. Bu katmanlar arasındaki uyum, adayların önceliklendirilmesini destekler ve herhangi bir tek analitik platforma olan bağımlılığı azaltır; ancak, elde edilen kanıtlar, immün ko-kültür veya in vivo sistemlerde doğrulanmadığı sürece immün regülasyon için ilişkisel kalmaya devam eder.
Glisinle ilişkili metabolik pertürbasyonları belirlemek için öncelikle LUAD ve komşu normal akciğer dokularının eşli doku metabolomikleri kullanılmıştır. Daha sonra; yolak ilgisi, tümördeki artış, prognostik ilişki ve deneysel uygulanabilirlik ile desteklenen mitokondriyal bir SGOC enzimi olan SHMT2'yi değerlendirmek için TCGA transkriptomik ve klinik verileri entegre edilmiştir. İmmün mikroçevre profillemesi, tek hücre haritalaması ve in vitro fonksiyonel doğrulama; metabolik değişim, enzim düzensizliği, hücresel dağılım ve tümör hücresi fenotipini kapsayan çok katmanlı, hipotez oluşturucu bir çerçeve oluşturmuştur. Pratik bir perspektiften, bu iş akışı taze dondurulmuş eşli dokular gerektirir. Kütle spektrometresi ile metabolit tanımlaması yarı niceldir; aday metabolitler bağımsız olarak doğrulanmalıdır. İmmünoterapi öngörüleri (TIDE/TCIA) ve ilaç duyarlılığı çıkarımları (oncoPredict), gerçek dünyadaki ICI tedavili kohortlarda klinik doğrulamanın yerini tutmayan transkriptom tabanlı hesaplamalı tahminlerdir ve hipotez oluşturucu olarak yorumlanmalıdır.
Protokol
Bu çalışma, Nanchang Üniversitesi İkinci Bağlı Hastanesi Kurumsal İnceleme Kurulu tarafından onaylanmıştır (CDEFYYLK 3-05). Helsinki Deklarasyonu'na uygun olarak, örnek toplama işleminden önce tüm hastalardan yazılı onam alınmıştır. Ham veriler, Materyaller Tablosu'nda listelenen yazılım ve web kaynakları kullanılarak dışa aktarılmış ve analiz edilmiştir.
Klinik doku toplama
Ocak ve Haziran 2024 tarihleri arasında cerrahi rezeksiyon geçiren ve patolojik olarak invaziv akciğer adenokarsinomu tanısı konulan hastalardan eşleşmiş tümör ve uzak normal akciğer dokuları toplandı. Örnekler, operasyonu gerçekleştiren cerrah tarafından çıkarıldı, rezeksiyondan sonraki 5 dk içinde işlendi, hemen sıvı azot içinde şok donduruldu ve analize kadar saklandı. Kimliksizleştirilmiş klinikopatolojik özellikler Ek Tablo 1'de sunulmuştur.
LUAD'ı normal akciğer dokularından ayırt etmek için dahili ekstraktif elektrospray iyonizasyon kütle spektrometrisi (iEESI-MS)
Doku örnekleri (1 mm3), pozitif iyon modunda hibrit lineer iyon tuzağı-elektrostatik orbital-tuzak kütle spektrometresi kullanılarak iEESI-MS ile analiz edildi. Metanol ekstraksiyon çözücüsü (%100), +5 kV bias ile 3.0 µL/min hızında verildi. iEESI-MS1 tarama aralığı m/z 50–2,000 idi. iEESI-MS2, %25–35 normalize çarpışma enerjisi, m/z 2.0 izolasyon penceresi ve 30 s dinamik dışlama süresi ile çarpışma kaynaklı ayrıştırma kullandı. Cihaz standart prosedürüne göre yapılan günlük dış kalibrasyon ile kütle hatası <5 ppm seviyesinde tutuldu. Medyan normalizasyonu, log₂ dönüşümü ve otoskalama sonrası, 200 permütasyon testi ile OPLS-DA gerçekleştirildi. Metabolitler HMDB kullanılarak tanımlandı ve yol zenginleştirme analizi KEGG anotasyonları kullanılarak yapıldı.
Kütle spektrometrisi veri işleme ve metabolit tanımlama
Ham MS verileri, medyan normalizasyonunun ardından log₂ dönüşümü ve otoskalama (ortalama merkezleme ve her bir değişkenin standart sapmasına bölme) ile normalize edilmiştir. Ayırt edici m/z özelliklerini belirlemek için Ortogonal Kısmi En Küçük Kareler Diskriminant Analizi (OPLS-DA) kullanılmıştır. VIP > 1,0, |log₂(FC)| > 0,58 ve p < 0,05 olduğunda özellikler diferansiyel olarak kabul edilmiştir. Diferansiyel özellikler MS2 analizine tabi tutulmuş ve Human Metabolome Database kullanılarak tanımlanmıştır. Ardından, değişen yolakları belirlemek ve yolakla ilgili enzimleri önceliklendirmek için KEGG tabanlı yolak zenginleştirmesi kullanılmıştır. Tanımlanan diferansiyel metabolitler Ek Tablo 2'de sunulmuştur.
TCGA tabanlı SHMT2 ekspresyonu, sağkalım ve klinikopatolojik ilişki analizleri
TCGA-LUAD için RNA-seq ekspresyon profilleri ve ilgili klinik anotasyonlar 18 Aralık 2025 tarihinde Genomic Data Commons'tan indirilmiştir; tümör (n = 542) ve normal (n = 59). Milyon eşlenmiş okuma başına transkript kilobazı başına fragman (FPKM) değerleri log2(FPKM + 1) şeklinde dönüştürülmüştür. Prognostik analizlere yalnızca tam sağkalım bilgisine sahip örnekler dahil edilmiştir. Tümör ve normal SHMT2 ekspresyon değerleri Wilcoxon sıra toplamı testi kullanılarak karşılaştırılmıştır. Hastalar, medyan ekspresyon değerine göre SHMT2-yüksek ve SHMT2-düşük gruplarına ayrılmıştır. Genel sağkalım, Kaplan-Meier analizi ve log-rank testi ile değerlendirilmiştir. Tümör-nod-metastaz (TNM) evresi, yaş ve cinsiyet ile olan ilişkiler, uygun şekilde ki-kare veya Wilcoxon testleri kullanılarak değerlendirilmiştir. 1, 3 ve 5 yıllık sağkalım için zamana bağlı alıcı işletim karakteristik (ROC) eğrileri oluşturulmuştur. Tüm istatistiksel testler çift yönlüdür.
Diferansiyel ekspresyon analizi ve fonksiyonel zenginleştirme (GO/KEGG)
SHMT2-yüksek ve SHMT2-düşük gruplar arasındaki farklı eksprese edilen genler (DEGs), yanlış keşif oranı < 0.05 ve |log₂(FC)| ≥ 1 kullanılarak belirlendi. Sonuçlar, bir volkan grafiği ve satır bazlı z-skoru normalizasyonu ile en üstteki 40 DEG'in ısı haritası şeklinde görselleştirildi. Gen Ontolojisi (GO) ve KEGG zenginleştirme analizlerinde düzeltilmiş p < 0.05 değeri kullanıldı. İnsan gen anotasyonları Aralık 2025'te Ensembl'dan alındı.
İmmün infiltrasyon, immünoterapi yanıt tahmini ve ilaç duyarlılığı çıkarımı
ImmuneScore, StromalScore ve ESTIMATEScore dahil olmak üzere tümör mikroçevre skorları ESTIMATE kullanılarak hesaplanmıştır. İmmün hücre kompozisyonu, LM22 referans seti (5 Aralık 2025 tarihinde indirilmiştir), 1.000 permütasyon ve dekonvolüsyon p < 0,05 olan örneklerin tutulması ile CIBERSORT kullanılarak çıkarılmıştır. SHMT2-yüksek ve SHMT2-düşük tümörler arasında grup bazlı karşılaştırmalar yapılmıştır. SHMT2 ile immün kontrol noktasıyla ilişkili genler arasındaki Spearman korelasyonları bir korelasyon matrisi olarak görselleştirilmiştir. İmmünofenoskorlar TCIA'dan alınmış ve immünoterapi yanıtının tamamlayıcı tahmini için TIDE kullanılmıştır. İlaç duyarlılığı, IC50 değerlerini tahmin etmek amacıyla Aralık 2023 GDSC sürümü ile eğitilmiş oncoPredict kullanılarak çıkarılmıştır. Grup farkları için Wilcoxon testleri, sürekli değişkenlerle ilişkiler için ise Spearman korelasyonları kullanılmıştır.
LUAD'ın tek hücreli RNA-seq analizi
Tek hücreli transkriptomik verileri19 20 Aralık 2025 tarihinde Gene Expression Omnibus'tan indirilmiş ve analiz edilmiştir. 200–6.000 arasında saptanan özelliğe sahip hücreler ve < Mitokondriyal transkriptlerin %10'u tutuldu. Sayımlar, 10.000'lik bir ölçek faktörü ile LogNormalize kullanılarak normalize edildi; değişkenliği en yüksek olan ilk 2.000 gen seçildi ve tüm genler ölçeklendi. Temel bileşen analizi için ilk 20 bileşen, UMAP için 1–20 arası boyutlar ve kümeleme için 0,5 çözünürlük kullanıldı. Hücre tipleri, Human Primary Cell Atlas referansı kullanılarak tanımlandı. Tümör ve normal örnekler arasında hücre tipi oranları karşılaştırıldı ve Spearman korelasyon matrisleri oluşturuldu. SHMT2 dağılımları, tanımlanan hücre tipleri genelinde incelendi. Hücre döngüsü durumları cyclone kullanılarak çıkarıldı ve ridge plot'lar ile görselleştirildi.
Hücre kültürü
BEAS-2B, H1299 ve A549 hücreleri, Malzeme Tablosu'nda belirtilen besiyeri ve takviyeler kullanılarak, %5 CO2 ve yaklaşık %95 bağıl nem değerine ayarlanmış nemlendirilmiş bir inkübatörde 37 °C'de kültüre edildi.
Kantitatif gerçek zamanlı ters transkripsiyon PCR (RT-qPCR)
Toplam RNA, fenol bazlı bir RNA ekstraksiyon reaktifi kullanılarak ekstrakte edilmiştir. Ekstrakte edilen RNA, bir ters transkripsiyon master mix kullanılarak cDNA'ya ters transkribe edilmiştir. Ters transkripsiyon; 42 °C'de 2 dk genomik DNA uzaklaştırma, 50 °C'de 15 dk ters transkripsiyon ve 85 °C'de 5 sn sonlandırma adımlarını içeren 20 µL'lik bir sistemde gerçekleştirilmiştir. Kantitatif PCR, DNA bağlayıcı boya bazlı bir qPCR master mix ile real-time PCR sisteminde, 95 °C'de 3 dk, ardından 40 döngü boyunca 95 °C'de 10 sn ve 60 °C'de 30 sn ve son olarak erime eğrisi adımı olarak 95 °C'de 15 sn, 60 °C'de 60 sn ve 95 °C'de 15 sn uygulanarak gerçekleştirilmiştir. Tüm reaksiyonlar üç tekrarlı olarak yürütülmüştür. Göreceli ekspresyon, housekeeping geni olarak GAPDH kullanılarak 2−ΔΔCt yöntemiyle hesaplanmıştır. Primer stok çözeltileri, çift distile su içerisinde 10 µM konsantrasyonda hazırlanmış ve -20 °C'de karanlıkta saklanmıştır. Primer sekansları Ek Tablo 3'te verilmiştir.
Western blotting
Toplam hücresel protein, buz üzerinde 30 dk boyunca radyoimmunopresipitasyon assay tamponu kullanılarak ekstrakte edilmiş ve 4 °C'de 15 dk boyunca 12,000 x g hızında santrifüjlenmiştir. Proteinler %12 sodyum dodesil sülfat-poliakrilamid jel elektroforezi ile ayrılmış ve 0,22 µm poliviniliden florür membranlara aktarılmıştır. Membranlar, oda sıcaklığında 2 saat boyunca %0,1 Tween 20 içeren Tris-tamponlu salin (%5 (w/v) yağsız süt ile birlikte) (TBST) ile bloke edilmiş ve %5 yağsız süt-TBST içerisinde seyreltilmiş anti-SHMT2 (1:1,000) ve anti-GAPDH (1:2,000) primer antikorları ile 4 °C'de gece boyunca inkübe edilmiştir. TBST (20 mM Tris-HCl, 150 mM NaCl, 0,1% Tween-20) ile her biri 8 dk süren üç yıkama işleminin ardından, membranlar oda sıcaklığında 1 saat boyunca yaban turpu peroksidaz-konjuge sekonder antikorlar (1:5,000) ile inkübe edilmiştir. Sinyaller, A ve B solüsyonlarının eşit hacimlerde karıştırılmasıyla hazırlanan gelişmiş kemilüminesans substratı kullanılarak, karanlıkta oda sıcaklığında 2 dk inkübe edilmiş ve bir kemilüminesans görüntüleme sistemi ile kaydedilmiştir.
HPA immünohistokimya doğrulaması
Normal akciğer dokusu ve LUAD'daki SHMT2 protein ekspresyon paternleri HPA kullanılarak değerlendirildi. HPA'da “SHMT2” sorgusu yapıldı ve karşılaştırma amacıyla temsili immünohistokimya (IHC) görüntüleri ile ilgili patoloji notları indirildi. Antikor spesifikliğinden kaynaklanan yanlılığı en aza indirmek için, HPA'da doğrulama seviyeleri daha yüksek olan antikorlara öncelik verildi. Mevcut olan durumlarda, birden fazla antikordan elde edilen IHC sonuçları çapraz referansla kontrol edildi (HPA020543 ve HPA020549).
LUAD hücrelerinde SHMT2 nakavt (knockdown) işlemi
LUAD'da SHMT2'nin tümör hücresine özgü rolünü araştırmak için, H1299 ve A549 hücrelerinde shRNA kullanılarak SHMT2 nakavt (knockdown) işlemi gerçekleştirilmiştir. shRNA, H1 promotörü tarafından yönlendirilen, puromisin seçilebilir bir lentiviral vektör aracılığıyla taşınmıştır; virüs üretimi sırasında paketleme plazmidleri birlikte transfekte edilmiştir. sh-SHMT2 insan SHMT2 kodlayan bölgesini hedeflerken, sh-NC randomize edilmiş bir negatif kontrol olarak kullanılmıştır. Hazırlanan viral stoklar ≥ 1 x 10⁸ transducing units/mL titrede olup -80 °C'de saklanmıştır. Hücreler, Materyal Tablosu'nda belirtilen hazırlanan sh-SHMT2 veya sh-NC lentiviral partikülleri ile enfekte edilmiştir. 48 saat sonra, nakavt verimliliği RT-qPCR ve western blotting ile değerlendirilmiştir. Proliferasyon, migrasyon ve koloni oluşum analizleri için yalnızca SHMT2 susturulması doğrulanmış hücreler kullanılmıştır.
Hücre proliferasyon analizi
Hücre proliferasyonu CCK-8 testi kullanılarak değerlendirildi. Transfekte edilen H1299 ve A549 hücreleri, 96 kuyucuklu plaklara her kuyucuğa 5 x 10³ hücre gelecek şekilde altılı tekrarlar halinde ekildi. 1, 2, 3, 4 ve 5. günlerde, her kuyucuğa 10 µL CCK-8 reaktifi eklendi (kültür ortamı hacminin %10'u) ve 37 °C'de 2 saat boyunca inkübe edildi. Absorbans 450 nm'de ölçüldü ve hücre canlılığı okuması olarak kullanıldı.
Yara iyileşme analizi
Hücre göçü, yara iyileşmesi deneyi kullanılarak değerlendirildi. Transfekte edilmiş H1299 ve A549 hücreleri 6 kuyucuklu plaklara ekildi ve %90–95 konfluens düzeyine ulaşana kadar kültüre edildi. Steril bir 200 µL pipet ucu kullanılarak lineer bir yara oluşturuldu ve ayrılan hücreler, fosfat tamponlu salin ile nazikçe yıkanarak uzaklaştırıldı. Hücreler daha sonra serumsuz veya düşük serumlu besiyerinde tutuldu ve yara alanı, bir ters mikroskop altında 0. saatta ve 24. saatte görüntülendi. Yara kapanması, Materyaller Tablosu'nda listelenen görüntü analiz yazılımı kullanılarak nicelleştirildi ve başlangıçtaki yara alanına göre yüzde azalma olarak hesaplandı.
Koloni oluşum testi
Koloni oluşum analizi için, transfekte edilmiş H1299 ve A549 hücreleri 6 kuyucuklu plaklara kuyucuk başına 800 hücre olacak şekilde ekilmiş ve kültür süresince mikroskobik izleme yapılarak görünür koloniler oluşana kadar yaklaşık 10–14 gün boyunca kültüre edilmiştir. Koloniler, oda sıcaklığında 30 dakika boyunca %4 paraformaldehit ile fikse edilmiş ve oda sıcaklığında 15 dakika boyunca %0,1 kristal viyole ile boyanmıştır. 50'den fazla hücre içeren koloniler ışık mikroskobu altında sayılmıştır.
in vitro deneyler için istatistiksel analiz
Tüm in vitro deneyler birbirinden bağımsız olarak en az üç kez gerçekleştirilmiştir. Veriler ortalama ± standart sapma olarak sunulmuştur. İki grup arasındaki karşılaştırmalarda Student t-testi kullanılmış ve p < 0.05 istatistiksel olarak anlamlı kabul edilmiştir.
Sonuçlar
Doku metabolomikleri, glisinle ilişkili yolakların belirgin zenginleşmesiyle birlikte LUAD'da kapsamlı metabolik yeniden yapılanmayı ortaya çıkarmaktadır
LUAD tanılı 23 hastadan alınan eşleştirilmiş tümör ve komşu normal akciğer dokuları, doğrudan iEESI-MS ile profillendi; hasta özellikleri ve diferansiyel metabolit anotasyonları Ek Tablo 1 ve Ek Tablo 2'de sunulmuştur. log2 normalizasyonundan sonra, OPLS-DA tümör ve normal metabolik profiller arasında net bir ayrım göstermiştir (R2X = 0.824, R2Y = 0.968, Q2 = 0.757) (Şekil 1A). Model güvenilirliği, R2 = 0.789 ve Q2 = −0.451 kesişim değerleri ile 200-permutasyon testi tarafından daha da desteklenmiştir (Şekil 1B). Önceden belirlenmiş kriterler —projeksiyondaki değişken önemi (VIP) > 1, |log2(FC)| > 0.58 ve p < 0.05— kullanılarak 45 diferansiyel m/z özelliği tanımlanmıştır (Şekil 1C). MS/MS kazanımı ve HMDB anotasyonu; glisin, serin ve butanon dahil olmak üzere değişime uğramış altı endojen metabolit sağlamıştır (Ek Tablo 2). KEGG zenginleştirme analizi, glisin, serin ve treonin metabolizmasının en belirgin olanlar arasında olduğu 11 yolak tanımlamış (Şekil 1D), bu da LUAD'da glisinle ilişkili metabolik yeniden şekillenmeye işaret etmiştir.
TCGA-LUAD, tümörlerde SHMT2 artışını doğrulamakta ve yüksek ekspresyonu kötü prognozla ilişkilendirmektedir
SHMT2, dört kriterin yakınsaması yoluyla önceliklendirilmiştir: SGOC metabolizmasının mitokondriyal giriş noktasındaki doğrudan konumu, TCGA-LUAD'da tümörle ilişkili belirgin yukarı regülasyonu, genel sağkalım ile ilişkisi ve deneysel pertürbasyona uygunluğu. TCGA-LUAD RNA-seq verileri, tümörlerde log2(FPKM + 1) SHMT2 ekspresyonunun normal akciğer dokularından anlamlı derecede daha yüksek olduğunu göstermiştir (Şekil 2A). Medyan kesme noktası kullanılarak yapılan Kaplan–Meier analizi, yüksek SHMT2 ekspresyonunun daha kötü genel sağkalım ile ilişkili olduğunu göstermiştir (Şekil 2B). Keşifsel klinikopatolojik analizler, tümör evresi ve lenf nodu durumu ile ilişkiler olduğunu ileri sürülebilirken (Şekil 2C), zamana bağlı ROC analizi 1, 3 ve 5. yıllarda > 0,70 AUC değerleri vermiştir (Şekil 2D).
SHMT2-yüksek tümörler, hücre döngüsü ilerlemesi ve SGOC metabolik aksı açısından zenginleşmiş transkripsiyonel programlar sergiler
SHMT2 ile ilişkili biyolojik programları belirlemek için, diferansiyel ekspresyon analizi öncesinde TCGA-LUAD tümörleri, medyan SHMT2 ekspresyon değerine göre SHMT2-yüksek ve SHMT2-düşük gruplarına ayrılmıştır (Şekil 3A). En yüksek düzeyde diferansiyel ekspresyon gösteren 40 genin ısı haritası, gruplar arasında belirgin ekspresyon modelleri ortaya koymuştur (Şekil 3B). GO zenginleştirme analizi; hücre döngüsü ilerlemesi, kromozom ayrılması ve mitotik bölünmeyi tanımlayarak (Şekil 3C), SHMT2-yüksek proliferatif transkripsiyonel fenotipinin tanımlanması için analitik temel sağlamıştır. KEGG zenginleştirme analizi ayrıca glisin, serin ve treonin metabolizmasını vurgulayarak (Şekil 3D), bunun yalnızca SHMT2'deki izole bir değişiklikten ziyade, koordine bir SGOC ilişkili transkripsiyon olduğunu göstermiştir.
Yüksek SHMT2 ekspresyonu, immünolojik olarak dezavantajlı bir mikroçevre, azalmış öngörülen immünoterapi faydası ve belirgin ilaç duyarlılığı modelleri ile ilişkilidir
ESTIMATE kullanılarak yapılan tümör mikroçevresi profillemesi, SHMT2-yüksek grubunda daha düşük ImmuneScore ve StromalScore değerlerini ortaya koymuştur (p < 0,001) (Şekil 4A). CIBERSORT dekonvolüsyonu; bellek B hücreleri, dinlenme halindeki bellek CD4 T hücreleri, monositler ve dinlenme halindeki mast hücrelerinin oranlarının daha düşük olduğunu, buna karşılık aktive olmuş bellek CD4 T hücreleri ve foliküler yardımcı T hücrelerinin oranlarının daha yüksek olduğunu göstermiştir (Şekil 4B). Korelasyon analizi ayrıca SHMT2'nin BTLA, TNFSF15 ve CD28 ile pozitif; CD160 ve TNFSF14 ile negatif ilişkili olduğunu belirlemiştir (Şekil 4C). TIDE ve TCIA kaynaklı immünofenoskurlar kullanılarak yapılan tamamlayıcı transkriptom tabanlı tahminler, SHMT2-yüksek tümörlerde öngörülen immünoterapi faydasının daha düşük olduğunu göstermiştir (p < 0,05) (Şekil 4D). Bu tahminler, klinik olarak tedavi edilmiş bir LUAD kohortundan elde edilmemiştir ve bu nedenle gerçek bir tedavi direncini kanıtlamamaktadır.
İlaç duyarlılığı deneysel olarak ölçülmek yerine bilgisayarlı yöntemlerle çıkarılmıştır. SHMT2-yüksek tümörlerin, bir glikojen sentaz kinaz-3 inhibitörü ve selumetinib için daha düşük öngörülen IC50 değerlerine; ancak talazoparib ve bir PLK1 inhibitörüne karşı daha düşük öngörülen duyarlılığa sahip olduğu görülmüştür (Şekil 4E–H). Sitarabine, irinotekan ve palbosiklib dahil olmak üzere dokuz ek ajana karşı azalan öngörülen duyarlılık Ek Şekil 1A–I'de gösterilmiştir. Bu bulgular aday hipotezlerdir ve klinik veya farmakolojik etkinlik oluşturmazlar.
Tek hücreli analiz, LUAD'da belirgin hücresel kompozisyonu ortaya çıkarmakta ve B hücrelerini SHMT2 eksprese eden baskın popülasyon olarak tanımlamaktadır
SHMT2'nin tümör mikroçevresi içindeki hücresel dağılımını incelemek için LUAD tek hücreli RNA-seq verileri analiz edildi. UMAP kümelemesi B hücrelerini, endotel hücrelerini, epitelyal hücreleri, T hücrelerini ve diğer ana bölmeleri tanımladı (Şekil 5A). Hücre tipi oranları tümör ve komşu normal dokular arasında farklılık gösterdi (Şekil 5B–C) ve B ile T hücresi oranları pozitif korelasyon gösterdi (p < 0.001) (Şekil 5D). SHMT2 ekspresyonu B hücresi bölmesinde nispeten zenginleşmişti ancak epitelyal hücrelerde de tespit edilebildi (Şekil 5E). Sadece transkript tespiti hücre fonksiyonunu veya malign durumu belirlemediği için, bu sonuçlar bir lokalizasyon hipotezi olarak yorumlanmıştır. SHMT2'nin tümör hücresine özgü rolü, LUAD hücre hatlarında ayrı olarak incelendi.
Tek hücreli hücre döngüsü analizi, hücre tipleri genelinde normalize edilmiş G1, S ve G2/M skorları hesaplanarak gerçekleştirilmiştir. G1 skorları sıfıra yakın yoğunlaşırken, S ve G2/M skorları daha geniş dağılımlar (Ek Şekil 2) ve belirgin hücre tipi heterojenliği (Şekil 5F) göstermiştir. Bu bulgular, LUAD mikroçevresi içinde proliferatif durum heterojenliğine işaret etmekte olup bulk GO/KEGG analizlerinde tanımlanan hücre döngüsü ve mitotik imzalarla uyumludur.
Deneysel doğrulama, SHMT2 aşırı ekspresyonunu teyit etmekte ve SHMT2 nakavtının LUAD hücrelerindeki malign fenotipleri baskıladığını göstermektedir
Biyoenformatik bulguları doğrulamak ve SHMT2'nin tümör hücresine özgü rolünü değerlendirmek amacıyla, toplu TCGA verilerindeki ve tek hücre analizindeki epitel hücrelerdeki saptamalarıyla tutarlı olarak, ekspresyon önce normal bronşiyal epitel hücrelerinde (BEAS-2B) ve LUAD hücre hatlarında (H1299 ve A549) incelenmiştir (Şekil 5E). RT-qPCR, H1299 ve A549 hücrelerinde BEAS-2B hücrelerine göre daha yüksek SHMT2 mRNA seviyeleri göstermiş (Şekil 6A), western blotting ise daha yüksek protein ekspresyonunu doğrulamıştır (Şekil 6B–C). Temsili HPA immünohistokimya görüntüleri de LUAD'da normal akciğer dokularına göre daha güçlü SHMT2 boyanması göstermiştir (Şekil 6D). SHMT2'nin LUAD'daki biyolojik fonksiyonunu daha ayrıntılı incelemek için H1299 ve A549 hücrelerinde shRNA kullanılarak SHMT2 susturulmuştur. RT-qPCR analizi, her iki hücre hattında da sh-SHMT2 gruplarında SHMT2 mRNA ekspresyonunun sh-NC gruplarına kıyasla belirgin şekilde azaldığını doğrulamıştır (Şekil 6E). Buna paralel olarak, Western blotting, knockdown sonrası SHMT2 protein ekspresyonunun etkili bir şekilde aşağı regüle edildiğini göstermiştir (Şekil 6F–G).
Fonksiyonel analizler, SHMT2 nakavtının LUAD hücrelerinin malign fenotipini önemli ölçüde bozduğunu göstermiştir. CCK-8 analizleri, SHMT2 susturulmasının hem H1299 hem de A549 hücrelerinin proliferasyon kapasitesini belirgin şekilde inhibe ettiğini ve bu farkın zamanla daha belirgin hale geldiğini ortaya koymuştur (Şekil 6H). Yara iyileşmesi analizleri, SHMT2 eksikliğinin her iki LUAD hücre hattının migrasyon yeteneğini kontrol hücrelerine kıyasla önemli ölçüde azalttığını göstermiştir (Şekil 6I). Benzer şekilde, koloni oluşum analizleri, SHMT2 nakavtının H1299 ve A549 hücrelerinin klonojenik potansiyelini anlamlı derecede azalttığını kanıtlamıştır (Şekil 6J). Toplu olarak bu bulgular, SHMT2'nin LUAD hücre proliferasyonunu, migrasyonunu ve koloni oluşturma yeteneğini desteklediğini göstermekte ve LUAD'daki pro-tümörijenik rolünü desteklemektedir.
VERİ ERİŞİLEBİLİRLİĞİ:
Şekillerin temelini oluşturan veriler de dahil olmak üzere, bu çalışmanın bulgularını destekleyen tüm ham veriler, Zenodo'da https://doi.org/10.5281/zenodo.20676134 adresinde kamuya açık olarak sunulmaktadır.
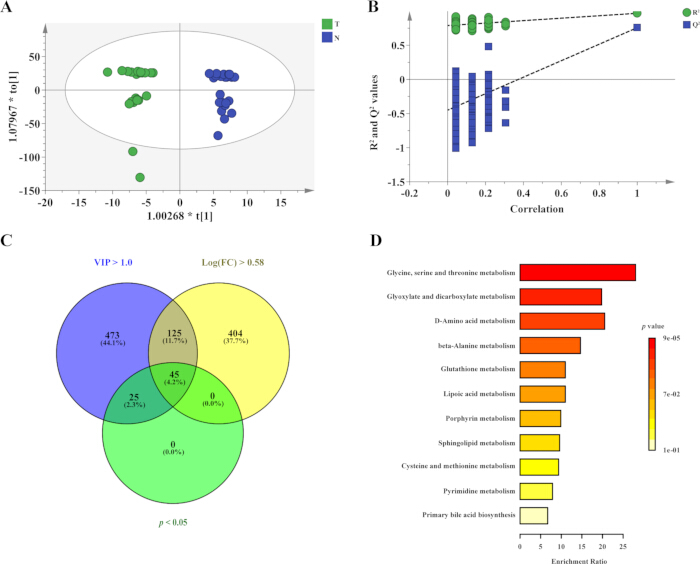
Şekil 1: Doku metabolomiği, LUAD'da glisinle ilişkili metabolik yeniden programlamayı ortaya koymaktadır. (A) LUAD dokuları (T, yeşil) ve eşleşmiş komşu normal dokular (N, mavi) arasındaki ayrımı gösteren OPLS-DA skor grafiği. (B) R2 ve Q2 değerlerine dayanarak OPLS-DA modelinin stabilitesini ve öngörü performansını değerlendiren permütasyon testi. (C) VIP skoru > 1.0, |log2(FC)| > 0.58 ve p < 0.05 kriterlerine göre taranan diferansiyel özelliklerin örtüşmesini gösteren Venn diyagramı. Kırk beş özellik korunmuştur. (D) Diferansiyel metabolitlerin KEGG tabanlı metabolit seti zenginleştirme analizi. Sütun uzunluğu zenginleştirme oranını, renk yoğunluğu ise p değerini temsil eder. Kısaltmalar: VIP = projeksiyonda değişken önemi; FC = kat değişimi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
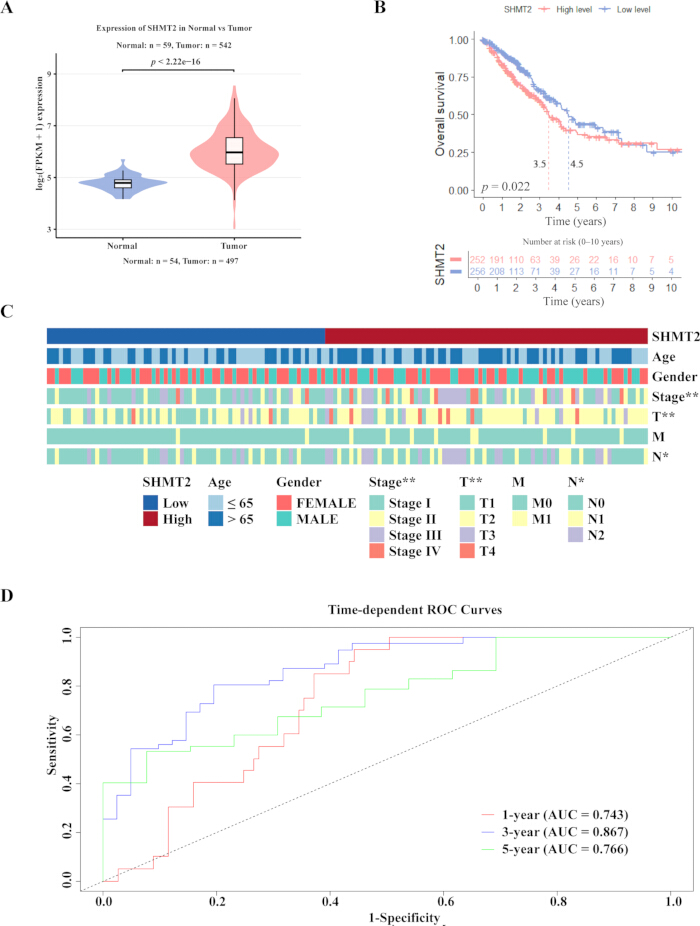
Şekil 2: SHMT2, LUAD'da yukarı regüle edilmiştir ve TCGA-LUAD'da olumsuz bir prognoz öngörmektedir. (A) TCGA-LUAD RNA-seq verileri kullanılarak normal akciğer dokuları (n = 59) ile LUAD tümörleri (n = 542) arasındaki SHMT2 ekspresyonunu karşılaştıran keman grafiği. (B) Medyan SHMT2 ekspresyon değerine göre ayrılan hastalar için Kaplan-Meier genel sağkalım eğrileri. SHMT2-yüksek pembe ile, SHMT2-düşük ise mavi ile gösterilmiştir. (C) SHMT2 ekspresyonu ile yaş, cinsiyet, genel patolojik evre (Evre I–IV), primer tümör evresi (T1–T4), bölgesel lenf nodu evresi (N0–N2) ve uzak metastaz evresi (M0–M1) dahil olmak üzere klinikopatolojik özellikler arasındaki ilişkileri gösteren ısı haritası. * işareti, SHMT2-yüksek ve SHMT2-düşük grupları arasındaki istatistiksel olarak anlamlı farkları belirtir (*p < 0.05; **p < 0.01; Ki-kare testi). (D) LUAD hastalarında 1, 3 ve 5 yıllık genel sağkalımı öngörmede SHMT2 ekspresyonunun prognostik performansını değerlendiren zamana bağlı ROC eğrileri. İlgili AUC değerleri panelde gösterilmiştir. Kısaltmalar: SHMT2 = serin hidroksimetiltransferaz 2; FPKM = eşleşmiş milyon okuma başına transkript kilobazı başına fragmanlar; ROC = alıcı işletim karakteristiği; AUC = eğri altındaki alan. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
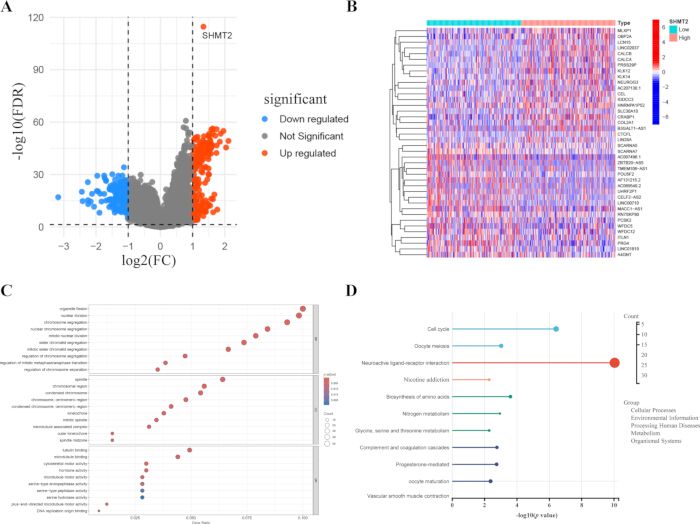
Şekil 3: SHMT2-yüksek ve SHMT2-düşük tümörlerin transkriptomik profillemesi, SGOC/tek karbon metabolizmasını ve proliferatif programları vurgulamaktadır. (A) SHMT2-yüksek ve SHMT2-düşük LUAD tümörleri arasında diferansiyel olarak eksprese edilen genleri gösteren yanardağ grafiği. Yukarı regüle edilen genler kırmızı, aşağı regüle edilen genler mavi ve anlamlı olmayan genler gri ile gösterilmiştir. (B) Denetimsiz hiyerarşik kümeleme ile temsili DEG'lerin ısı haritası. (C) Diferansiyel olarak eksprese edilen genlerin Gen Ontolojisi zenginleştirme analizi. Baloncuk boyutu gen sayısını, renk düzeltilmiş p değerini ve x-ekseni gen oranını göstermektedir. (D) Diferansiyel olarak eksprese edilen genlerin KEGG yol zenginleştirme analizi. Nokta boyutu gen sayısını ve x-ekseni −log₁₀(p değeri) değerini göstermektedir. Kısaltmalar: SHMT2 = serine hydroxymethyltransferase 2; FDR = yanlış keşif oranı; FC = kat değişimi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
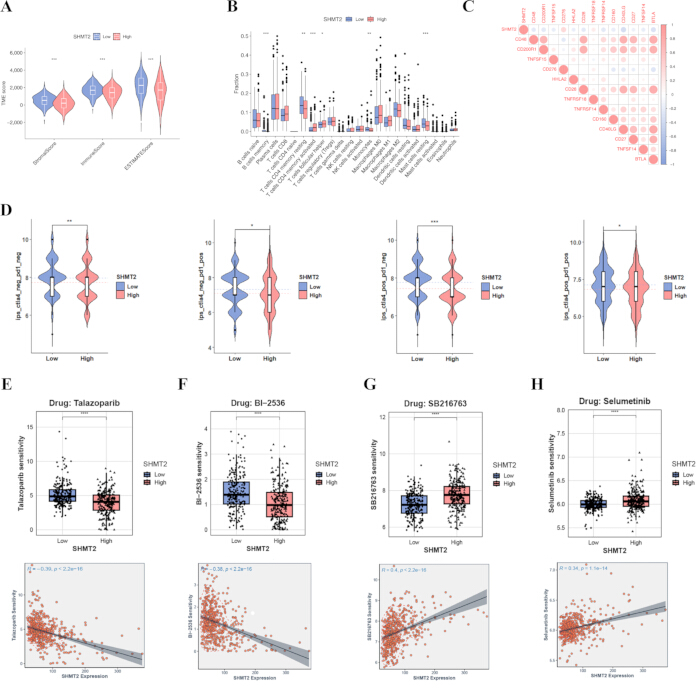
Şekil 4: SHMT2 ekspresyonu, tümör immün bağlamı, öngörülen immünoterapi yanıtı ve ilaç duyarlılığı ile ilişkilidir. (A) SHMT2-yüksek ve SHMT2-düşük ekspresyon grupları arasında TME skoru, ESTIMATE skoru, stromal skor, immün skor ve tümör saflığının karşılaştırılması. (B) SHMT2-düşük ve SHMT2-yüksek tümörler arasında CIBERSORT ile tahmin edilen immün hücre infiltrasyonunun karşılaştırılması. (C) SHMT2 ve immün kontrol noktasıyla ilişkili genler arasındaki Spearman korelasyon matrisi. Daire boyutu korelasyon gücünü, renk ise Spearman ρ değerini (pozitiften negatife) temsil eder. (D) Dört immün kontrol noktası blokajı durumu (CTLA4-/PD-1-, CTLA4-/PD-1+, CTLA4+/PD-1-, CTLA4+/PD-1+) altındaki immunophenoscore karşılaştırmaları, SHMT2-yüksek tümörlerde öngörülen faydanın azaldığını göstermektedir. (E) SHMT2-yüksek ve SHMT2-düşük ekspresyon gruplarında Talazoparib'e karşı öngörülen duyarlılık; tahmin edilen IC₅₀ değerleri (üstte) ve SHMT2 ekspresyonu ile öngörülen ilaç duyarlılığı arasındaki korelasyon (altta) olarak gösterilmiştir. (F) SHMT2-yüksek ve SHMT2-düşük ekspresyon gruplarında BI-2536'ya karşı öngörülen duyarlılık; tahmin edilen IC₅₀ değerleri (üstte) ve SHMT2 ekspresyonu ile öngörülen ilaç duyarlılığı arasındaki korelasyon (altta) olarak gösterilmiştir. (G) SHMT2-yüksek ve SHMT2-düşük ekspresyon gruplarında S63845'e karşı öngörülen duyarlılık; tahmin edilen IC₅₀ değerleri (üstte) ve SHMT2 ekspresyonu ile öngörülen ilaç duyarlılığı arasındaki korelasyon (altta) olarak gösterilmiştir. (H) SHMT2-yüksek ve SHMT2-düşük ekspresyon gruplarında Selumetinib'e karşı öngörülen duyarlılık; tahmin edilen IC₅₀ değerleri (üstte) ve SHMT2 ekspresyonu ile öngörülen ilaç duyarlılığı arasındaki korelasyon (altta) olarak gösterilmiştir. Kısaltmalar: SHMT2 = serine hydroxymethyltransferase 2; TME = tümör mikroçevresi; ESTIMATE = Expression data using Estimation of STromal and Immune cells in MAlignant Tumor tissues; IC₅₀ = yarı maksimal inhibitör konsantrasyonu. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
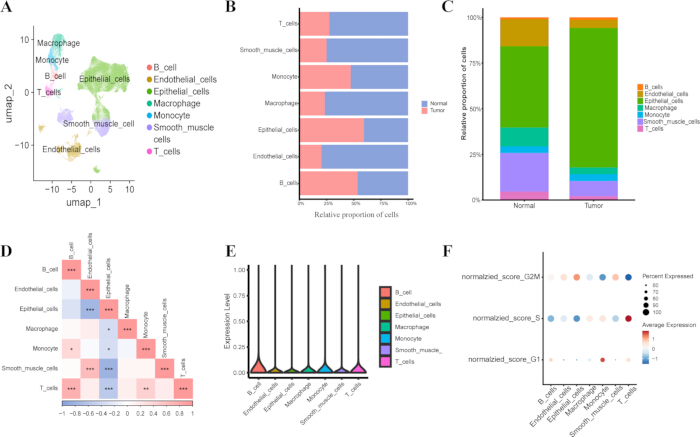
Şekil 5: Tek hücreli manzara, LUAD'da değişmiş hücresel kompozisyonu, SHMT2 ekspresyon yanlılığını ve hücre döngüsü heterojenliğini ortaya çıkarmaktadır. (A) LUAD ve komşu normal akciğer dokularından alınan, kamuya açık tek hücreli transkriptomların, açıklanmış hücre tipine göre renklendirilmiş UMAP görselleştirmesi. (B) Normal ve tümör örneklerindeki göreceli hücre tipi oranları yatay yığılı çubuklar şeklinde gösterilmiştir. (C) Genel hücresel kompozisyon dikey yığılı çubuklar şeklinde gösterilmiştir. (D) Hücre tipi oranlarının Spearman korelasyon ısı haritası; kırmızı pozitif, mavi ise negatif korelasyonu belirtir (*p < 0.05, **p < 0.01, ***p < 0.001). (E) Temel hücre tipleri genelinde SHMT2 ekspresyonunun keman grafikleri. (F) Belirlenen hücre tipleri genelinde G1, S ve G2/M fazı hücre döngüsü skorlarını gösteren nokta grafiği; nokta boyutu hücrelerin yüzdesini, renk ise ortalama hücre döngüsü skorunu belirtir. Kısaltmalar: UMAP = Uniform Manifold Approximation and Projection. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
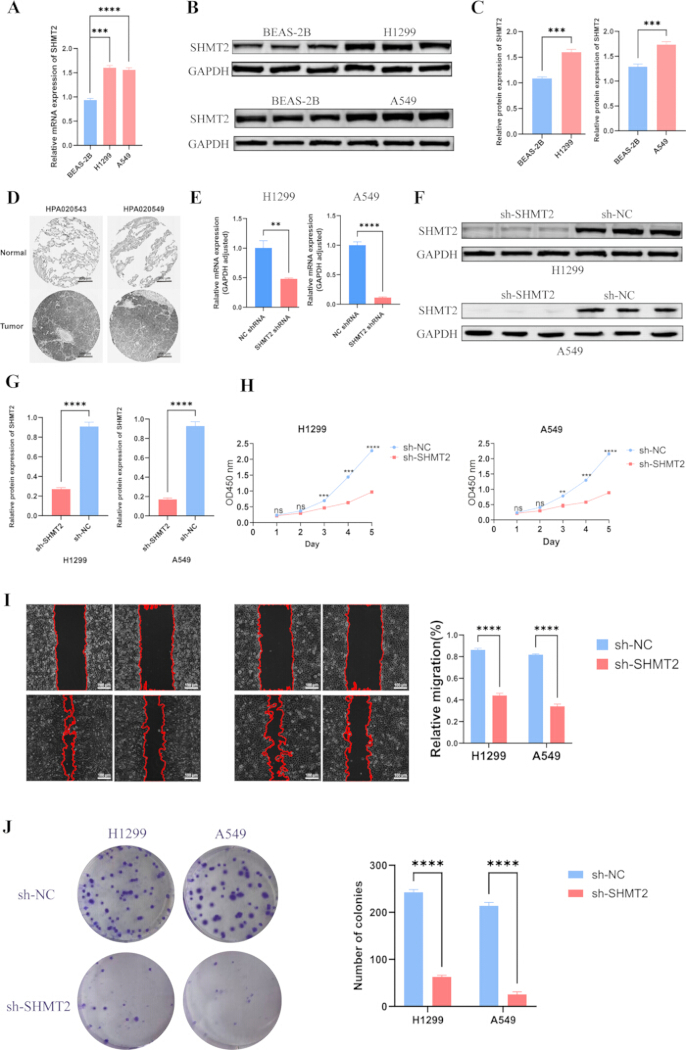
Şekil 6: LUAD hücrelerinde SHMT2 ekspresyonunun deneysel ve histolojik doğrulaması ve SHMT2 nakavtının fonksiyonel etkileri. (A) Normal bronşiyal epitel hücrelerinde (BEAS-2B) ve LUAD hücre hatlarında (H1299 ve A549) SHMT2 mRNA ekspresyonunun RT-qPCR analizi. (B) Yükleme kontrolü olarak GAPDH kullanılarak BEAS-2B, H1299 ve A549 hücrelerinde SHMT2 protein ekspresyonunun Western blot analizi. (C) H1299 ve A549 hücrelerinde BEAS-2B'ye göre GAPDH ile normalize edilmiş SHMT2 protein ekspresyonunun densitometrik kantifikasyonu. (D) HPA'dan alınan normal akciğer ve LUAD dokularında HPA020543 ve HPA020549 antikorları kullanılarak elde edilen SHMT2'nin temsili immünohistokimya (IHC, x20) görüntüleri. (E) sh-SHMT2 veya sh-NC ile transfekte edilen H1299 ve A549 hücrelerinde SHMT2 nakavt verimliliğinin RT-qPCR doğrulaması. (F) H1299 ve A549 hücrelerinde SHMT2 nakavtı sonrası SHMT2 protein ekspresyonunun Western blot analizi. (G) SHMT2 nakavtı sonrası GAPDH ile normalize edilmiş SHMT2 protein seviyelerinin densitometrik kantifikasyonu. (H) H1299 ve A549 hücrelerinde SHMT2 nakavtının hücre proliferasyonu üzerindeki etkilerini gösteren Hücre Sayım Kiti-8 (CCK-8) analizleri. (I) H1299 ve A549 hücrelerinde SHMT2 nakavtı sonrası azalmış migrasyon yeteneğini gösteren yara iyileşme analizleri (x200); sağ panel göreli migrasyonun kantifikasyonunu göstermektedir. (J) H1299 ve A549 hücrelerinde SHMT2 nakavtı sonrası azalmış klonojenik yeteneği gösteren koloni oluşum analizleri; sağ panel koloni sayılarının kantifikasyonunu göstermektedir. Veriler, en az üç bağımsız deneyden elde edilen ortalama ± SD olarak sunulmuştur. *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. Kısaltmalar: sh-NC = kısa saç tokası RNA negatif kontrol; sh-SHMT2 = SHMT2'yi hedefleyen kısa saç tokası RNA. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil 1: SHMT2 ekspresyonu, TCGA-LUAD'da öngörülen ilaç duyarlılığı ile ters ilişkilidir. Medyan kesme noktasına göre tanımlanan SHMT2-düşük ve SHMT2-yüksek tümörler arasında TCGA-LUAD örnekleri için öngörülen ilaç yanıtı çıkarılmış ve karşılaştırılmıştır. Her bir bileşik için üst panel, IC50 (yarı-maksimal inhibitör konsantrasyon) tabanlı bir yanıt skorundaki gruplar arası farklılıkları göstermektedir (daha düşük değerler daha yüksek öngörülen duyarlılığı gösterir); alt panel ise sürekli SHMT2 ekspresyonu ile öngörülen duyarlılık arasındaki ilişkiyi, uygun bir lineer regresyon çizgisi ve %95 güven bandı ile birlikte göstermektedir. Grup karşılaştırmaları için iki yönlü Wilcoxon sıralama toplam testi kullanılmış ve korelasyonlar ilgili p değerleri ile birlikte Spearman r değeri olarak raporlanmıştır (* p < 0.05, ** p < 0.01, *** p < 0.001). (A) Sitarabin. (B) GDC0810. (C) P22077. (D) İrinotekan. (E) AZD4547. (F) Palbosiklib. (G) VE821. (H) I-BRD9. (I) Oksaliplatin.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 2: Tek hücre çözünürlüğünde farklı hücre tipleri arasındaki hücre döngüsü faz skoru dağılımlarının ridge plot görselleştirmesi.Ridge plotlar; B hücreleri, T hücreleri, epitel hücreleri, makrofajlar, monositler, endotel hücreleri ve düz kas hücreleri dahil olmak üzere ana hücre tipleri genelindeki normalize edilmiş hücre döngüsü skoru dağılımlarını göstermektedir. (A) G1 fazı skorları. (B) S fazı skorları. (C) G2/M fazı skorları. Dağılım şekli ve pik konumundaki farklılıklar, LUAD mikroçevresindeki hücre popülasyonları arasında proliferatif durumların heterojen olduğunu göstermektedir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 1: Eşleştirilmiş doku metabolomiğine dahil edilen 23 LUAD hastasının kimliksizleştirilmiş klinikopatolojik özellikleri. Değişkenler arasında hasta numarası, cinsiyet, yaş, primer tümör evresi (T), bölgesel lenf düğümü evresi (N) ve genel patolojik evre yer almaktadır. Lütfen bu dosyayı indirmek için buraya tıklayınız.
Ek Tablo 2: LUAD ile eşleşmiş komşu normal dokular arasında belirlenen diferansiyel metabolitler. Tablo, her bir diferansiyel metabolit için HMDB erişim numarasını, metabolit adını, moleküler formülü, VIP skorunu, log₂(FC) değerini ve p değerini listelemektedir. Kısaltmalar: HMDB = Human Metabolome Database; VIP = variable importance in projection; FC = fold change. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 3: Kantitatif ters transkripsiyon PCR (RT-qPCR) için kullanılan primer dizileri. Tablo, gen ekspresyon analizi için kullanılan hedef geni, primer yönünü (ileri veya geri) ve primer dizisini (5′–3′) listelemektedir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu çalışmada metabolomik keşif, enzim önceliklendirmesi, transkriptomik yorumlama, immün bağlam değerlendirmesi, tek hücreli lokalizasyon ve tümör hücresi fonksiyonel doğrulamasından oluşan ardışık bir çerçeve kullanılmıştır. Analizler, LUAD'da glisinle ilişkili ve SGOC metabolik yeniden yapılanmasını tanımlamakta ve SHMT2'yi olumsuz sonuçlar ile bilgisayar ortamında tahmin edilen daha düşük immünoterapi faydası ile ilişkilendirmektedir. Bu önceliklendirme, tek bir omik katmanına dayanmaktan daha güçlüdür ancak immün-nedensel bir mekanizma kurmamaktadır.
SHMT2, serinin glisine dönüştürülmesi ve tek karbonlu birimlerin üretilmesi için temel bir mitokondriyal giriş noktasını oluşturur. TCGA-LUAD analizi, tümörle ilişkili SHMT2 artışını göstermiş ve yüksek ekspresyonu daha düşük sağkalım ile olumsuz klinikopatolojik özelliklerle ilişkilendirmiştir. Bu bulgular, SHMT2'yi kanser hücresi sağkalımı, proliferasyonu, invazyonu ve tedavi direnci ile ilişkilendiren çalışmalarla uyumludur20,21,22,23. Ek çalışmalar SHMT2'yi epigenetik regülasyon ile ilişkilendirmiş ve seçici tek karbonlu enzim inhibitörlerinin geliştirilmesine ön ayak olmuştur24,25. Diferansiyel ekspresyon ve zenginleştirme analizleri, SHMT2'yi izole bir gen düzeyindeki değişiklikten ziyade, koordine bir SGOC ve hücre döngüsü programı içine yerleştirmiştir. Bu nedenle, metabolit yolu zenginleştirmesi ile SHMT2 ile ilişkili transkripsiyon arasındaki uyum, aday önceliklendirmesini güçlendirmekte ancak omik katmanlar genelinde korelatif kalmaya devam etmektedir.
SHMT2-yüksek tümörler ile bağışıklık açısından dezavantajlı bir bağlam arasındaki ilişki, birbirini dışlamayan üç yol üzerinden kurgulanabilir. Birincisi, tümör hücrelerinin serin, glisin, folat bağlantılı tek karbonlu birimler ve metiyonin döngüsü substratlarına olan artmış talebi, besin paylaşımını değiştirebilir ve komşu lenfositlerin metabolik uygunluğunu azaltabilir. İkincisi, SHMT2 destekli NADPH, glutatyon ve nükleotid üretimi, oksidatif ve besin stresinde tümör hücresi sağkalımını iyileştirebilir ve böylece mikroçevreye salınan stresle ilişkili sinyalleri değiştirebilir. Üçüncüsü, tek karbon akışı ve S-adenozilmetiyonin mevcudiyeti, hem malign hem de immün hücrelerdeki metilasyona bağımlı programları etkileyebilir26,27,28,29. Bu mekanizmalar biyolojik olarak makul olsa da, mevcut toplu ve tek hücreli analizler lokal metabolitleri, sitokin salınımını veya immün hücre fonksiyonunu doğrudan ölçmemiştir. Sonuç olarak, SHMT2-yüksek tümörlerde TIDE/TCIA tarafından öngörülen daha düşük fayda, SHMT2'nin klinik immünoterapi direncine neden olduğunun bir kanıtı olarak değil, SGOC aktivitesini bağışıklık dezavantajına bağlayan bir hipotez olarak yorumlanmalıdır.
Tek hücreli analizler ek yapısal çözünürlük sağlamaktadır. Kamuya açık tek hücreli RNA-seq verilerinin analizi, tümör ve normal akciğer dokuları arasında değişmiş hücre bileşimi ve koordineli adaptif immünite ile uyumlu olarak B ve T hücresi oranları arasında pozitif bir ilişki olduğunu göstermiştir30. SHMT2 ekspresyonu B hücrelerinde nispeten zenginleşmişti ancak epitel hücrelerinde saptanabilir düzeyde kalmaya devam etti. B hücreleri ve tersiyer lenfoid yapıların antijen sunumunu, lokal antikor yanıtlarını ve immün kontrol noktası blokajına yanıtı destekleyebilmesi nedeniyle bu gözlem önemlidir18,31,32,33; ancak bu durum, sorumlu B hücresi alt tipini belirlememekte veya B hücresi SHMT2'sinin faydalı mı yoksa zararlı mı olduğunu kanıtlamamaktadır. Bulk ve tek hücreli sonuçlar ayrıca hücre döngüsü aktivitesinde de örtüşmüştür: mitoz ve kromozom ayrışma terimleri SHMT2-yüksek tümörlerde zenginleşmişti ve S ve G2/M fazı skorları hücre tipleri arasında farklılık gösteriyordu. Mitokondriyal tek karbon metabolizması nükleotid öncülleri sağladığından, bu bulgular SHMT2 ile ilişkili SGOC aktivitesi ile proliferatif talep arasında makul bir bağlantıyı desteklemektedir.
Xi ve ark., makrofaj eferositozunu artıran, M2 benzeri polarizasyonu teşvik eden ve özofagus kanserini immünsupresyona doğru yeniden şekillendiren bir TP63-RAC2 programı tanımlayarak34, tümör-makrofaj iletişimi için doğrudan bir örnek sunmuştur. Jiang ve ark., pankreas kanserindeki SATB2'yi tümör hücresi proliferasyonu ve migrasyonunun yanı sıra değişmiş T hücresi sitotoksisitesi ile ilişkilendirerek35, eş zamanlı tümör içi ve immün etkileri örneklendirmiştir. Buna karşılık Liu ve ark., TRIM29'un NEFL degradasyonu ve PI3K/AKT aktivasyonu yoluyla glioblastomayı tetiklediğini göstermiştir36; öncelikle tümör içi olan bu mekanizma, her olumsuz immün ilişkini sitokin sinyaline atfetmemek konusunda uyarıcıdır. Zhai ve ark., hepatosellüler karsinomda WDR54 aracılı NF-κB sinyal amplifikasyonunu tanımlayarak37, malign davranışı mikroçevresel sinyalleşme ile eşleştirebilen sitokin duyarlı bir inflamatuar nodun altını çizmiştir. Yin ve ark., ko-kültür ve in vivo deneyler kullanarak, baş ve boyun kanserinde PLAU'nun sinir büyüme faktörü ilişkili perinöral etkileşimlerle iş birliği yaptığını göstermiş38 ve çözünür ile hücre dışı faktörlerin immün olmayan stromal çapraz etkileşimleri organize edebileceğini kanıtlamıştır. Son olarak, Liu ve ark., sitokin kaynaklı JAK/STAT sinyal yolunun bağlama bağlı ikili rollerini özetlemiştir: kalıcı IL-6/STAT3 ve IFN ilişkili sinyalleşme PD-L1 ekspresyonunu, süpresif miyeloid durumları ve T hücresi bitkinliğini teşvik edebilirken, uygun zamanlamalı sinyalleşme antijen sunumu ve antitümör immünite için de gereklidir39. Toplu olarak bu çalışmalar, SGOC yeniden programlamasının sitokin, makrofaj, stromal veya lenfosit durumlarını değiştirip değiştirmediğini test etmek için biyolojik bir temel sağlamakta, ancak hiçbiri LUAD'da SHMT2'ye özgü bir sitokin devresi kurmamaktadır. Dolayısıyla mevcut TIDE/TCIA bulguları, mekanistik çalışmalar için test edilebilir bir yön belirlemektedir.
Redoks düzenlemesi özellikle ilgili bir mekanistik bağlam sunmaktadır. DeNicola ve arkadaşları, küçük hücreli dışı akciğer kanserinde NRF2'nin ATF4 aracılığıyla PHGDH, PSAT1 ve SHMT2'yi düzenlediğini, glutatyon ve nükleotid üretimini desteklediğini ve bu programı kötü prognozla ilişkilendirdiğini göstermiştir40. Daha yakın zamanda Zhang ve arkadaşları, HER2 inhibisyonundan kurtulan özofagus adenokarsinom hücrelerinin NRF2 biriktirdiğini göstermiştir; NRF2 knockdown'ı lapatinib sitotoksisitesini artırırken, sürdürülen NRF2 ekspresyonu duyarlılığı azaltmış ve NRF2 bağımlılığı oluşturmuştur41. İkinci çalışma SHMT2 inhibisyonunu doğrudan test etmemiştir, ancak bu bulgular birlikte SHMT2'nin NRF2 destekli bir redoks ve biyosentetik programın parçası olarak işlev görebileceğini düşündürmektedir. LUAD'da bu hipotez, KEAP1/NFE2L2 durumuna göre tabakalama yapılarak ve SHMT2 perturbasyonunun seçici olarak reaktif oksijen türlerini artırıp artırmadığı veya NRF2-aktif modellerde tedavi duyarlılığını yeniden sağlayıp sağlamadığı belirlenerek test edilmelidir.
Sadece metabolomik veya sadece transkriptomik analizlerle karşılaştırıldığında, entegre iş akışı doku düzeyindeki bir metabolit sinyalini yolakla ilgili gen ekspresyonuna, hücre tipi dağılımına ve bir pertürbasyon fenotipine bağlar. Bu tasarım, aday önceliklendirmesini iyileştirir ve halka açık transkriptomik veya tek hücreli kohortların ikame edilmesiyle ölçeklendirilebilir; ancak her katman farklı değişkenlik kaynakları getirir. Eksizyon sonrası gecikme küçük molekül bolluğunu değiştirebileceği için hızlı ve homojen doku dondurma işlemi kritik öneme sahiptir. Metabolit yorumlamasından önce; kütle spektrometrik kayma, kararsız toplam iyon sinyali veya zayıf permütasyon performansı yeniden kalibrasyonu, sinyal kalitesi incelemesini ve yeniden analizi tetiklemelidir. Toplu analizler önceden belirlenmiş gruplandırma ve filtreleme eşikleri gerektirirken, tek hücreli sonuçlar makul kalite kontrol ve kümeleme çözünürlüğü ayarlarıyla test edilmelidir. In vitro doğrulama, fenotip analizlerinden önce eşleşmiş hücre pasajı, karşılaştırılabilir konfluens, tek tip yara genişliği ve onaylanmış SHMT2 nakavt işlemi gerektirir. Bu kontrol noktaları tekrarlanabilirliği artırır ancak kohorta, platforma veya modele özgü etkileri ortadan kaldırmaz.
Yorumlamayı kısıtlayan birkaç sınırlama bulunmaktadır. Doku metabolomiks kohortu mütevazı düzeydeydi ve tanımlanan metabolitlerin hedefli kantitatif doğrulamaya ihtiyacı vardır. İmmünoterapi faydası ve ilaç hassasiyeti, ICI ile tedavi edilmiş bir kohortta veya farmakolojik deneyde ölçülmek yerine transkriptom tabanlı modellerden çıkarılmıştır. Tek hücreli veri seti, B hücresi ağırlıklı SHMT2 ekspresyonuna işaret etmekte ancak B hücresi alt tipini, uzamsal organizasyonu veya SHMT2'ye bağımlı immün fonksiyonu çözümlememektedir. in vitro deneyler, genetik knockdown sonrası bir tümör hücresi büyüme ve migrasyon fenotipi saptamış ancak sitokin aracılı bir immün mekanizma veya terapötik güvenlik oluşturmamıştır. Gelecekteki çalışmalar tümörleri KEAP1/NFE2L2 durumuna göre tabakalandırmalı, SGOC akışını ve sitokin sekresyonunu kantifiye etmeli ve SHMT2 perturbasyonunu immün ko-kültür, uzamsal profilleme, farmakolojik seçicilik çalışmaları ve in vivo doğrulama ile birleştirmelidir.
Özetle, LUAD'da SHMT2; SGOC metabolik yeniden düzenlenmesi, olumsuz prognoz, proliferatif transkripsiyonel programlar, immünolojik açıdan dezavantajlı bir tümör ortamı ve bilgisayar tabanlı öngörülerle daha düşük immünoterapi yanıtı ile ilişkilidir. Tek hücreli analiz, SHMT2 ekspresyonunun B hücresi popülasyonlarında nispeten zenginleştiğini göstermiş, in vitro nakavt ise LUAD hücrelerinde proliferasyonu, migrasyonu ve klonojenik büyümeyi azaltmıştır. Bu bulgular, SHMT2'nin daha ileri doğrulama çalışmaları için bir aday biyobelirteç olduğunu desteklemekte ve metabolik-immün etkileşimlerin incelenmesi için test edilebilir bir çerçeve sunmaktadır.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Teşekkürler
Yazarlar, bu çalışmaya katılımları için hastalara ve ailelerine teşekkür ederler. Yazarlar ayrıca, verilerini kamuya açık hale getirdikleri için TCGA, GEO ve HPA veri tabanlarına katkıda bulunanlara şükranlarını sunarlar. Bu araştırma, Jiangxi Eyaleti Temel Araştırma ve Geliştirme Programı (hibe no. 20223BBG71009) ve Çin Ulusal Doğa Bilimleri Vakfı (hibe no. 81860379 ve 82160410) tarafından finanse edilmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| A549 hücreleri | CCL-185 | ATCC | |
| anti-GAPDH antikoru | M1310-2 | Huaan Biotechnology | |
| anti-SHMT2 antikoru | D197021 | Sangon Biotech | |
| BEAS-2B hücreleri | CRL-9609 | ATCC | |
| Hücre Sayım Kiti-8 (CCK-8) | K1018 | APExBIO | |
| Veritabanı: TCGA / GDC | Erişim tarihi 2025-12-18 | National Cancer Institute (NCI) | |
| Veritabanı: GEO | Erişim tarihi 2025-12-20 | NCBI | |
| Veritabanı: HMDB | Erişim tarihi 2025-12-12 | Human Metabolome Database | |
| Veritabanı: KEGG | Erişim tarihi 2025-12-11 | Kanehisa Laboratories | |
| Veritabanı: Human Protein Atlas | Protein Atlas | ||
| Veritabanı: GDSC | 2023-12 sürümü | Sanger Institute | |
| Veritabanı: Ensembl | 2025-12 | EMBL-EBI | |
| Veritabanı: TCIA | Erişim tarihi 2025-12-10 | The Cancer Immunome Atlas | |
| H1299 hücreleri (NCI-H1299) | CRL-5803 | ATCC | |
| HRP-konjuge ikincil antikor | D110087 | Sangon Biotech | |
| HiScript II Q Select RT SuperMix | KR116 | Tiangen Biotech | |
| LightCycler 480 Sistemi | 5015278001 | Roche | |
| Yağsız süt | Yaygın laboratuvar reaktifi | BD (veya kullanılan) | |
| PVDF membran, 0.22 µm | GVHP00010 (veya yaygın laboratuvar reaktifi) | MilliporeSigma (veya kullanılan) | |
| R paketi: pRoloc | 1.40.0 | Bioconductor | |
| R paketi: TCGAbiolinks | 2.26.0 | Bioconductor | |
| R paketi: survival | 3.4-0 | CRAN | |
| R paketi: survminer | 0.4.9 | CRAN | |
| R paketi: timeROC | 1.0.4 | CRAN | |
| R paketi: DESeq2 | 1.38.1 | Bioconductor | |
| R paketi: ggplot2 | 3.4.4 | CRAN | |
| R paketi: pheatmap | 1.0.12 | CRAN | |
| R paketi: clusterProfiler | 4.6.2 | Bioconductor | |
| R paketi: org.Hs.eg.db | 3.16.0 | Bioconductor | |
| R paketi: estimate | 1.0.13 | Bioconductor / GitHub | |
| R paketi: CIBERSORT | 1 | (bağımsız R betiği) | |
| R paketi: corrplot | 0.92 | CRAN | |
| R paketi: TIDE | 0.3.0 | R paketi | |
| R paketi: oncoPredict | 1.1.1 | CRAN / GitHub | |
| R paketi: GEOquery | 2.66.0 | Bioconductor | |
| R paketi: Seurat | 4.3.0 | CRAN | |
| R paketi: SingleR | 1.10.0 | Bioconductor | |
| R paketi: scran | 1.26.0 | Bioconductor | |
| SYBR Green qPCR Master Mix (Universal) | HY-K0501A | MedChemExpress (MCE) | |
| TRIzol Universal Reagent | DP424 | Tiangen Biotech |
Kaynaklar
- Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75(1):10-45.
- Lim ZF, Ma PC. Emerging insights of tumor heterogeneity and drug resistance mechanisms in lung cancer targeted therapy. J Hematol Oncol. 2019;12(1):134.
- Wang M, Herbst RS, Boshoff C. Toward personalized treatment approaches for non-small-cell lung cancer. Nat Med. 2021;27:1331-1340.
- Passaro A, et al. Managing resistance to immune checkpoint inhibitors in lung cancer: treatment and novel strategies. J Clin Oncol. 2022;40:598-609.
- Faubert B, Solmonson A, DeBerardinis RJ. Metabolic reprogramming and cancer progression. Science. 2020;368:eaaw5473.
- Wei S, et al. Targeting serine-glycine-one-carbon metabolism as a vulnerability in cancers. Biomark Res. 2023;11:48.
- Kao KC, Vilbois S, Tsai CH, Ho PC. Metabolic communication in the tumour-immune microenvironment. Nat Cell Biol. 2022;24(11):1574-1583.
- Wong C, Qian Y, Yu J. Interplay between epigenetics and metabolism in oncogenesis: mechanisms and therapeutic approaches. Oncogene. 2017;36:3359-3374.
- Xu M, Pei DS. Serine hydroxymethyltransferase 2: a novel target for human cancer therapy. Invest New Drugs. 2021;39:1671-1681.
- Zeng Y, et al. Roles of mitochondrial serine hydroxymethyltransferase 2 (SHMT2) in human carcinogenesis. J Cancer. 2021;12(19):5888-5894.
- Liberati FR, et al. RNA-mediated inhibition of mitochondrial SHMT2 impairs cancer cell proliferation. Cell Death Discov. 2025;11:369.
- Fu R, et al. SHMT proteins: an emerging set of serine hydroxymethyltransferase in cancer. Cell Signal. 2025;135:111977.
- Zhang Y, et al. SHMT2 promotes cell viability and inhibits ROS-dependent, mitochondrial-mediated apoptosis via the intrinsic signaling pathway in bladder cancer cells. Cancer Gene Ther. 2022;29(10):1514-1527.
- Wens M, et al. Metabolic control of BRISC-SHMT2 assembly regulates immune signalling. Nature. 2019;570:460-464.
- Ivashkiv LB. IFNγ: signalling, epigenetics and roles in immunity, metabolism, disease and cancer immunotherapy. Nat Rev Immunol. 2018;18:545-558.
- De Martino M, Rathmell JC, Galluzzi L, Vanpouille-Box C. Cancer cell metabolism and antitumour immunity. Nat Rev Immunol. 2024;24:654-669.
- Qi Y, et al. One-carbon metabolism shapes T cell immunity in cancer. Trends Endocrinol Metab. 2024;35:961-974.
- Huang D, et al. The single-cell immunogenomic landscape of B and plasma cells in early-stage lung adenocarcinoma. Cancer Discov. 2022;12:2545-2563.
- Dolgalev I, et al. Inflammation in the tumor-adjacent lung as a predictor of clinical outcome in lung adenocarcinoma. Nat Commun. 2023;14:6479.
- Han T, et al. Phosphorylated SHMT2 regulates oncogenesis through m6A modification in lung adenocarcinoma. Adv Sci (Weinh). 2024;11:e2307834.
- Lee GY, et al. Comparative oncogenomics identifies PSMB4 and SHMT2 as potential cancer driver genes. Cancer Res. 2014;74:3114-3126.
- Bernhardt S, et al. Proteomic profiling of breast cancer metabolism identifies SHMT2 and ASCT2 as prognostic factors. Breast Cancer Res. 2017;19:112.
- Yang G, Tan J, Guo J, Wu Z, Zhan Q. Exosome-mediated transfer of circ_0063526 enhances cisplatin resistance in gastric cancer cells via regulating the miR-449a/SHMT2 axis. Anticancer Drugs. 2022;33(10):1047-1057.
- Parsa S, et al. The serine hydroxymethyltransferase-2 (SHMT2) initiates lymphoma development through epigenetic tumor suppressor silencing. Nat Cancer. 2020;1:653-664.
- Cuthbertson CR, et al. A review of small-molecule inhibitors of one-carbon enzymes: SHMT2 and MTHFD2 in the spotlight. ACS Pharmacol Transl Sci. 2021;4:624-646.
- Reina-Campos M, Scharping NE, Goldrath AW. CD8+ T cell metabolism in infection and cancer. Nat Rev Immunol. 2021;21:718-738.
- Bacigalupa ZA, Landis MD, Rathmell JC. Nutrient inputs and social metabolic control of T cell fate. Cell Metab. 2024;36:10-20.
- Li S, et al. Metabolic regulation of immunity in the tumor microenvironment. Cell Rep. 2025;44(11):116463.
- Ouyang Y, et al. S-adenosylmethionine: a metabolite critical to the regulation of autophagy. Cell Prolif. 2020;53(11):e12891.
- Wang R, et al. The interaction of innate immune and adaptive immune system. MedComm. 2024;5(10):e714.
- Teillaud JL, et al. Tertiary lymphoid structures in anticancer immunity. Nat Rev Cancer. 2024;24:629-646.
- Fridman WH, et al. B cells and tertiary lymphoid structures as determinants of tumour immune contexture and clinical outcome. Nat Rev Clin Oncol. 2022;19:441-457.
- Lauss M, Donia M, Svane IM, Jönsson G. B cells and tertiary lymphoid structures: friends or foes in cancer immunotherapy? Clin Cancer Res. 2022;28(9):1751-1758.
- Xi Y, et al. Macrophage efferocytosis mediated by the TP63-RAC2 pathway promotes immunosuppressive remodeling in esophageal cancer. Cell Rep Med. 2026;7(1):102529.
- Jiang G, et al. SATB2 plays a critical role in pancreatic cancer cell proliferation, migration and T cell cytotoxicity. Cancer Genet. 2025;296-297:53-64.
- Liu Y, et al. TRIM29 promotes glioblastoma progression via ubiquitinating NEFL and activating the PI3K/AKT signaling pathway. Cancer Genet. 2025;296-297:88-99.
- Zhai H, et al. WDR54 enhances NF-κB signaling to promote progression of hepatocellular carcinoma. Cancer Genet. 2025;298-299:302-314.
- Yin H, et al. PLAU serves as a prognostic biomarker correlated with perineural invasion in HNSCC. Cancer Genet. 2025;294-295:145-155.
- Liu Z, et al. JAK inhibition in PD-1 immunotherapy and tumor microenvironment. Front Immunol. 2026;17:1790936.
- DeNicola GM, et al. NRF2 regulates serine biosynthesis in non-small cell lung cancer. Nat Genet. 2015;47(12):1475-1481.
- Zhang W, et al. NRF2-mediated persistent adaptation of oesophageal adenocarcinoma cells to HER2 inhibition. Oncogene. 2025;44(33):2929-2941.