Bu derleme, spermatogenez aşamaları boyunca mitokondriyal kalite kontrolüne (biyogenez, dinamikler ve mitofaji) ilişkin kanıtları sentezleyerek, metabolik değişimler ve yapısal yeniden şekillenme ile erkek kısırlığı arasındaki bağlantıyı kurmakta ve gelecekteki araştırmalara yön vermek amacıyla metodolojik boşlukları belirlemektedir.
Derleme makalesi
Mitokondriyal Kalite Kontrol: Spermatogenezin Bir Kapı Bekçisi
Bu makalede
Özet
Özet
Erkek kısırlığı dünya genelinde artmaktadır. Spermatogenez, enerjik açıdan zahmetli bir süreçtir ve biyogenez, füzyon-fisyon dinamikleri ve mitofaji dahil olmak üzere mitokondriyal kalite kontrolü (MQC) ile sıkı bir şekilde bağlantılıdır. Burada, germ hücrelerinin gelişim evreleri boyunca mevcut kanıtları sentezleyerek, glikoliz destekli ATP üretiminden oksidatif fosforilasyon (OXPHOS) ağırlıklı metabolizmaya geçişteki evreye özgü değişimleri ve mitokondriyal mimarinin orta parça kılıfına yeniden şekillenmesini vurguluyoruz. OPA1/MFN1-2'nin iç/dış membran füzyonundaki, DRP1/FIS1/MFF'nin fisyon ve kılıf organizasyonundaki rollerini ve mitokondriyal kalite kontrolünde PINK1–Parkin bağımlı ve bağımsız mitofajinin rollerini içeren genetik ve fonksiyonel verileri özetliyoruz; bununla birlikte, spermiyogenez sırasında sitoplazma uzaklaştırılması ve akrozom bakımının, spesifik olarak mitofajiden ziyade genel otofajiyi içerebileceğini kabul ediyoruz. Mitokondriyal disfonksiyon —aşırı reaktif oksijen türleri (ROS), mitokondriyal membran potansiyeli (MMP) çökmesi, düzensiz dinamikler veya defektif mitofaji— spermatogenezi ve sperm fonksiyonunu bozar. Ayrıca, özellikle standartlaştırılmış fenotipleme ve insan genetik kanıtlarının eksikliği olmak üzere, translasyonu sınırlayan metodolojik boşlukları tanımlıyoruz. MQC nedenselliğinin ve ilaçla tedavi edilebilirliğinin netleştirilmesi, erkek kısırlığında gelecekteki tanısal veya terapötik araştırmaları destekleyebilir.
Giriş
Sperm kalitesi dünya genelinde düşmektedir ve anormal sperm kalitesinden kaynaklanan erkek kısırlığı insidansı artmaktadır1. Yakın tarihli bir meta-analiz, 1973 ile 2011 yılları arasında Kuzey Amerika, Avrupa, Avustralya ve Yeni Zelanda'daki erkeklerin sperm sayılarının %50–60 oranında azaldığını2 ve bu düşüşün 2000 yılından beri hızlandığını göstermiştir3. Sperm kalitesindeki hızlanmış düşüş dünya çapında bildirilmiştir2,3,4,5,6. Bu düşüşün nedenleri, erkek fertilitesini korumak için daha fazla çalışmayı ve hedeflenmiş önlemleri gerektirmektedir.
Spermatogenez, testisin seminifer tüplerinde gerçekleşir. Bu süreç, seminifer tüplerin uzun ekseni boyunca spermatojenik hücrelerin belirli kombinasyonlarını içeren dalga benzeri bir süreçtir ve nihayetinde spermatogoniyal kök hücrelerin (SSCs) çoğalarak spermatozoaya farklılaşmasını sağlar7. Memelilerde spermatogenez, biyolojideki en karmaşık ve uzun farklılaşma süreçlerinden biridir. İnsanlarda tam bir spermatojenik döngü 64–74 gün sürerken, her bir seminifer epitel döngüsü 16 gün sürer. Bu karmaşık süreç; mitokondrilerin şeklinde, sayısında ve dağılımında önemli değişiklikler içerir8.
Mitokondriyal kalite kontrolü (MQC)—mitokondriyal biyogenez, füzyon, fisyon ve seçici mitofajının koordineli süreçleri—değişen biyenerjetik talepler altında organel bütünlüğünü korur8,9. Testiste MQC evreye özgüdür ve prolifere olan spermatogonyaların mayoz ve spermiyogeneze geçişini destekleyerek, sperm orta parçasında sıkıca paketlenmiş bir mitokondriyal kılıfın oluşumuyla sonuçlanır9. Şekil 1, spermatogenez sırasındaki MQC mekanizmasını sunmaktadır. MQC bileşenlerinin bozulması, model organizmalarda ve insanlarda defektif spermatogeneze ve subfertiliteye yol açabilir. Bu derleme, mevcut mekanistik içgörüleri bütünleştirmekte ve translasyonel fırsatların ana hatlarını çizmektedir.
İnceleme ve perspektif
Spermatogenez ve mitokondriyal enerji metabolizması
Spermatogenez; spermatogonyumların proliferasyonunu, bunların spermatositlere farklılaşmasını, mayoz bölünmeyi, spermatidlerin olgunlaşmasını ve seminifer tüb lümenine spermiasyonunu içeren üç ardışık aşamadan oluşur: mitotik proliferasyon, mayoz ve spermiyogenez. Spermatogonyumlar, rezerv ve yenilenen tipler olarak kategorize edilir. Bazı spermatogonyumlar kök hücreler olarak kalırken, diğerleri farklılaşma yoluyla spermatogeneze katılır. Ayrıca, bazıları apoptoz gibi programlı hücre ölümlerine uğrar. Diploid primer spermatositler, haploid spermatidlere farklılaşmak için iki tur mayoz bölünme geçirirler. Spermiyogenez sırasında, yuvarlak spermatidlerin bölünmesi durur ve bunlar, nihayetinde olgun spermatozoalara gelişecek olan oldukça uzun spermatidlere dönüşürler.
Spermatogenez; germ hücreleri (spermatogonyumlar, spermatositler, spermatidler ve spermatozoa dahil) ile destekleyici Sertoli hücreleri arasındaki koordineli etkileşimlerin yanı sıra kan-testis bariyeri bütünlüğünün korunmasını gerektirir10,11. Komşu Sertoli hücreleri arasındaki sıkı bağlantılarla oluşan kan-testis bariyeri, seminifer epitelini bazal ve adluminal kompartımanlara ayırarak germ hücresi gelişimi için temel olan özelleşmiş bir mikroortam oluşturur ve bunu sürdürür11,12. Sonuç olarak, spermatogonyal kök hücrelerden olgun spermatozoa kadar uzanan spermatogenez süreci, bu benzersiz testiküler mikroortam içerisinde gerçekleşir. Sperm üretimi süreci büyük ölçüde mitokondriyal fonksiyona dayanır13. Ökaryotik hücrelerin enerji metabolizma merkezi olan mitokondriler, sperm üretimi için temel olarak kabul edilir. Spermin oluşturulması, mitokondrilerin enerji kaynağına ve sinyalizasyon işlevlerine yüksek derecede bağımlıdır. Gelişmekte olan germ hücrelerinde mitokondriler, sadece spermatogenez için gerekli ATP'yi sağlamakla kalmaz, aynı zamanda hücre içi sinyalizasyona, hücre döngüsü düzenlemesine ve programlı hücre ölümüne katılarak süreci etkiler13. Leydig hücrelerinde mitokondriler, steroid hormon üretimi için kritik bir rol oynar ve bu testiküler interstisyel hücrelerde testosteron üretimi için mitokondriyal ATP sentezi gereklidir14. Ek olarak, bağımsız DNA'ya sahip tek organel olması nedeniyle, mitokondriyal DNA sperm kalitesiyle yakından ilişkilidir. Bu nedenle, mitokondriyal durumun ve düzenleyici mekanizmalarının anlaşılması, spermatogenez sürecinin aydınlatılması ve erkekle fertilitesinin korunması açısından önemlidir.
Enerji metabolizması, önemli miktarda ATP gerektiren spermatogenez için kritik öneme sahiptir. ATP üretimi için iki temel yol, mitokondriyal oksidatif fosforilasyon (OXPHOS) ve glikolizdir. ATP arzı evreye bağlıdır; OXPHOS mayoz ve orta parça oluşumu sırasında giderek daha önemli hale gelirken, glikoliz, özellikle olgun spermatozoalarda ATP üretimine önemli ölçüde katkıda bulunur. Glikoliz ayrıca esnek ve hızlı bir enerji kaynağı sağlayarak sperm olgunlaşmasını, motilitesini ve dişi üreme kanalından geçişini destekler.
Ancak, spermatogonyumlarda ve erken spermatositlerde mitokondriler nispeten küçüktür ve sınırlı OXPHOS aktivitesi sergilerler. Spermatogenez; spermatositler, spermatidler ve spermatozoalar gibi daha ileri aşamalara ilerledikçe, mitokondriler yeniden şekillenir ve OXPHOS aktiviteleri mekansal olarak daha yoğun ve verimli hale gelir. Ayrıca, kan-testis bariyeri nedeniyle, mevcut substratlar aşamalara göre farklılık gösterir. Seminifer epitelin bazal kompartmanında yer alan spermatogonyumlar, dolaşımdaki glikoza erişebilir ve glikoliz yoluyla enerji üretebilirler. Buna karşılık, adluminal kompartmandaki spermatositler ve spermatidler, kan-testis bariyeri ile kandan ve interstisyumdan ayrılmış durumdadırlar ve glikozu glikoz taşıyıcılar (GLUTs) aracılığıyla absorbe edip glikoliz yoluyla piruvata dönüştüren Sertoli hücrelerine bağımlıdırlar. Piruvat daha sonra laktat dehydrogenaz (LDH) tarafından laktata dönüştürülür. Laktat, monokarboksilat taşıyıcılar (MCTs) aracılığıyla spermatositlere taşınır ve burada LDH tarafından tekrar piruvata dönüştürülür; ardından piruvat, trikarboksilik asit (TCA) döngüsüne girebilmek için piruvat dehydrogenaz (PDH) tarafından asetil-CoA'ya dönüştürülebilir. Son olarak piruvat, OXPHOS'u desteklemek için mitokondriyal piruvat taşıyıcı aracılığıyla mitokondriye taşınır.
Mitokondriyal disfonksiyon nedeniyle spermatogenezin bozulması
Spermiasyon sırasında, olgun spermatozoalar Sertoli hücrelerinden seminifer tübüllerin lümenine salınır ve ardından epididime taşınır. Bu süreç, mitokondrilerden gelen önemli bir enerji kaynağı gerektirir. Mitokondriyal fonksiyon bozulduğunda, spermatogenez engellenir. Mitokondriyal disfonksiyonun temel belirtileri arasında reaktif oksijen türlerinin (ROS) aşırı üretimi, mitokondriyal membran potansiyelindeki (MMP) değişiklikler, mitokondriyal fisyon ve füzyon dinamiklerindeki dengesizlikler, bozulmuş mitokondriyal biyogenez, kusurlu mitofaji ve kalsiyum iyonu homeostazının bozulması yer alır.
Mitokondrilerin OXPHOS aracılığıyla ATP ürettiği süreç, aynı zamanda ROS üretimiyle de birlikte gerçekleşir. Mitokondriler, temel olarak mitokondriyal elektron taşıma zincirinin (ETC) solunum kompleksleri I ve III'te üretilen ROS'ların ana kaynağıdır15. Normal fizyolojik koşullar altında, uygun ROS seviyeleri spermatogenezi düzenleyen sinyal yollarında yer alır. Ancak, aşırı ROS redoks dengesizliğine yol açarak oksidatif strese neden olabilir ve spermatogenezi bozabilir. Bu nedenle, mitokondriyal enerji metabolizması ile ROS üretimi arasındaki denge, spermatogenezin sağlanmasında kilit bir faktördür.
Verimli mitokondriyal OXPHOS, solunum karbon substratlarının (örneğin pirüvat, yağ asitleri) mitokondri dış membranından geçerek intermembran boşluğa girmesini gerektirir. Bu substratlar daha sonra iç mitokondri membranında bulunan taşıyıcılar aracılığıyla matrikse taşınır ve burada TCA döngüsüne katılırlar. TCA döngüsünde, bu karbon substratları oksidatif yıkıma uğrayarak nikotinamid adenin dinükleotid (NADH) ve flavin adenin dinükleotid (FADH2) üretirler. Bu ürünler ETC'ye elektron bağışlayarak ADP ve inorganik fosfatla (Pi) ATP sentezi için OXPHOS'u sürdürürler. TCA döngüsündeki veya ETC yollarındaki kesintiler sperm üretimini bozabilir16. Hücresel enerji durumunun ve mitokondriyal fonksiyonun bir göstergesi olan MMP'nin, sperm motilitesiyle17 ve genel dölleme kapasitesiyle18 ilişkili olduğu gösterilmiştir.
Mitokondriyal stres altında, fisyon hasarlı mitokondriyal segmentleri ayırabilirken, füzyon içerik karışımını ve fonksiyonel tamamlamayı destekleyebilir. Hasarlı veya fazla mitokondriler daha sonra mitofaji yoluyla degrade edilip geri dönüştürülebilir. Mitokondriyal biyogenez, fisyon, füzyon ve mitofaji birlikte, mitokondriyal fonksiyonu ve yeniden şekillenmeyi destekleyen mitokondriyal kalite kontrolünü (MQC) oluşturur19.
Spermatogenez, spermatogonyumların spermatozoaya farklılaşmasını içerir; bu süreç yalnızca hücre morfolojisinde önemli değişikliklere yol açmakla kalmaz, aynı zamanda enerji metabolizmasının desteğini ve düzenlemesini de gerektirir. Hücrelerin enerji santralleri olan mitokondriler; enerji kaynağı, sinyal iletimi ve programlı hücre ölümü dahil olmak üzere spermatogenezin temel yönlerinde kritik bir rol oynar. Spermatogenez sırasında, germ hücrelerinin metabolik gereksinimleri gelişimin farklı aşamalarında değişiklik gösterir. Mitokondri sayısı ve morfolojisi, spermatogenez boyunca önemli değişimlere uğrar. Sperm oluşumu sırasında birçok mitokondri atılırken, tutulan mitokondriler spermin orta parçasında organize olarak aksonem ve ilişkili kamçı yapıları etrafında bir mitokondriyal kılıf oluşturur. Bu nedenle, spermatogenez sırasında çeşitli testis hücrelerindeki mitokondriler sürekli olarak füzyon ve fisyona uğrar; bu durum, normal işlevlerini sağlamak ve spermatogenezin yüksek enerji taleplerini karşılamak için verimli ve hassas bir MQC mekanizması gerektirir. Spermler üretildikçe, mitokondrilerin hem morfolojisi hem de sayısı önemli değişiklikler gösterir ve MQC bu süreçte kritik bir rol oynar. MQC ile ilişkili temel hedef proteinler Tablo 1'de listelenmiştir.
Spermiogenez ve mitokondriyal dinamikler
Mitokondriler; morfolojileri, boyutları ve hücre içi dağılımları, koordineli füzyon ve fisyon yoluyla sürekli olarak yeniden şekillendirilen ve topluca mitokondriyal dinamikler olarak adlandırılan bir süreçle değişen oldukça dinamik organellerdir. Normal fizyolojik koşullar altında füzyon ve fisyon, mitokondriyal homeostazı koruyan, fonksiyonel tamamlamayı kolaylaştıran ve hücre bölünmesi sırasında uygun mitokondriyal kalıtımı sağlayan dinamik bir dengede bulunur. Bu dengenin; genetik ablasyon, translasyon sonrası modifikasyon kusurları veya patolojik stres yoluyla bozulması, mitokondriyal fonksiyonları impairs eder, enerji üretimini tehlikeye atar ve nihayetinde spermatogenezi engeller. Mitokondriyal dinamiklerin hassas düzenlemesi, özellikle germ hücrelerinde kritik öneme sahiptir; çünkü spermatogenez, mitokondriyal mimarinin ve aktivitenin evreye özgü adaptasyonunu gerektiren dramatik metabolik değişimler ve kapsamlı morfolojik yeniden şekillenmeler içerir.
Mitokondriyal füzyon, dış mitokondriyal membrandaki MFN1 ve MFN2 ile iç membrandaki OPA1 tarafından gerçekleştirilerek içeriğin karışmasını, fonksiyonel tamamlamayı ve mitokondriyal DNA bütünlüğünün korunmasını kolaylaştırır. Füzyon yalnızca savunmacı bir yanıt değil, germ hücresi farklılaşması sırasında mitokondriyal kalıtımı ve metabolik adaptasyonu destekleyen bağlama bağlı bir mekanizmadır. Spermatogonyal farklılaşma sırasında MFN ekspresyonu artar ve MFN1 veya MFN2'den herhangi birinin kaybı, spermatogonyalarda ve spermatositlerde DNA oksidasyonuna ve apoptoza yol açarak erkek kısırlığına neden olur20,21. MFN1 mutasyonları farelerde, spermatositlerde belirgin azalma ve sperm üretiminin başarısız olmasıyla birlikte testiküler atrofiye neden olurken, farklılaşmamış spermatogonya etkilenmeden kalır; bu durum MFN1'in meyotik ilerleme için gerekli olduğunu göstermektedir20. Buna karşılık MFN2, hem mitokondriyal hem de endoplazmik retikulum fonksiyonlarını düzenleyerek spermatogenezde farklı bir rol oynar21.
Mitokondriyal fisyon, FIS1, MFF, MID49 ve MID51 dahil olmak üzere adaptör proteinler aracılığıyla dış mitokondriyal membrana çekilen DRP1 tarafından yönetilir. Çekilmenin ardından DRP1, GTP-bağımlı bir şekilde mitokondriyi daraltan ve bölen halka benzeri oligomerler oluşturur. Bu süreç üç ana adımdan oluşur: DRP1'in fosforilasyon ile aktivasyonu, FIS1, MFF, MID49 ve MID51 ile etkileşimler aracılığıyla dış membrana çekilmesi ve GTP tüketerek iki ayrı organel üreten, mitokondriyi çevreleyen ve daraltan bir halka yapısına dönüştürülmesi. Fisyon, yalnızca depolarize olmuş mitokondrilerin temizlenmesi veya artan enerji taleplerinin karşılanması için kullanılan bir mekanizma değil; aksine mitokondriyal dağılımı, hasarlı bileşenlerin ayrılmasını, hücre bölünmesi sırasında kalıtımı ve mitokondriyal mimarinin yeniden şekillendirilmesini düzenleyen koordineli bir süreçtir. DRP1 eksikliği olan fareler embriyonik olarak letaldir22,23; MFF eksikliği olan fareler düşük fertilite ve sperm sayısı sergilemektedir, bu da erkek germ hücre gelişiminde mitokondriyal fisyonun incelenmesi için değerli bir model sunmaktadır24. Mitokondriyal fisyon, spermiyogenez sırasında mitokondriyal kılıfın uygun şekilde oluşması için gereklidir.
Spermatogenez, enerjik açıdan maliyetli bir süreçtir; temel olarak spermatogonyumlarda glikolize, spermatosit ve spermatidlerde ise OXPHOS'a dayanır. OXPHOS, özellikle mayoz sırasında kritik öneme sahiptir ve verimliliği, bozulmamış mitokondriyal dinamiklere bağlıdır25,26. Mayozun ardından, MFF ve diğer fisyon proteinleri mitokondriyal fisyonu düzenler ve sperm mitokondriyal kılıfının oluşumuna katılır24. Spermiyogenez sırasında, bazı mitokondriler seçici olarak tutulur ve kılıf şeklinde yeniden yapılandırılır; fazla mitokondriler ve sitoplazmik bileşenler ise otofaji yoluyla elenir27. OPA1, DRP1 ve MFF gibi proteinler, sperm fonksiyonlarını geliştirmek için aday araştırma hedefleri olabilir, ancak terapötik önemleri daha fazla doğrulanmaya gereksinim duymaktadır. İnsan spermatogenezinde MQC'nin daha derinlemesine araştırılması, erkek kısırlığında gelecekteki tanısal veya terapötik araştırmaları kolaylaştırabilir.
Spermatogenez ve mitokondriyal otofaji
Mitofaji, spermatogenezde kritik bir rol oynar28. Mitofaji temel olarak, hasarlı mitokondriyelerin otofagozomlar tarafından yutulmasını içerir. Hasarlı mitokondriyiler içeren otofagozomlar daha sonra lizozomlarla birleşir ve mitokondriyeler lizozomal aktivite yoluyla degrade edilerek hasarlı mitokondriyiler temizlenir ve kalite kontrolü sağlanır. Mitokondriyal otofajinin klasik yolu PINK1/Parkin yoludur; ancak PINK1/Parkin'den bağımsız yollar da tanımlanmıştır29.
Otofaji; spermatogenez sırasında akrozom bütünlüğünün korunmasına, spermatid polarizasyonuna ve sitoplazmik bileşenlerin yıkımına yardımcı olur, ancak mitokondriyal temizleme spesifik olarak kanıtlanmadıkça bu süreçler seçici mitofajiden ziyade genel otofajiyi yansıtır. Çalışmalar, mitofajinin mitokondriyal dinamiklerle yakından ilişkili olduğunu ve mitokondriyal fisyonun, fazla veya hasarlı mitokondrilerin uzaklaştırılması için mitofajiyi kolaylaştırabileceğini bulmuştur30. FIS1, bir mitokondriyal fisyon proteini olmasına rağmen, spermatogenez sırasındaki mitofajide de rol oynar31. RAB7A, mitofagozom oluşumunda ve otofagozom olgunlaşmasında yer alır32. FIS1, mitokondriyal GTPaz aktive edici protein TBC1D15 ile etkileşime girer33,34. TBC1D15, vezikül ve lizozomların füzyonunda ve otofagozomların olgunlaşmasında görev alan RAB7A aktivitesini düzenler34,35. FIS1 inaktive olduğunda, RAB7A mitokondri yüzeyinde aktif kalabilir ve bu durum, düzensiz otofagozom membran büyümesine ve tübülleşmeye yol açar; LC3 agregasyonu optik mikroskopi ile gözlemlenebilir35. Mitofaji, DRP1 aracılı mitokondriyal fisyondan bağımsız olarak da gerçekleşebilir, bu nedenle fisyon, mitokondriyal temizleme için zorunlu olarak değerlendirilmemelidir35.
Spermiyogenez sırasında, spermatidlerdeki fazla hücresel bileşenler ayıklanır ve çalışmalar otofagozomların spermatidlerde en yoğun olduğunu bulmuştur36. Temel otofaji geni Atg7, spermatogenez sırasında spermatid polarizasyonu ve sitoplazma uzaklaştırılmasıyla ilişkilendirilmiştir; ancak, bu bağlamda erken germ hücresi tiplerinin daha az etkilendiği görülmektedir27,36. Ek olarak, mitofaji; Leydig hücreleri29, spermatogoniyal kök hücreler/projenitörler37,38, Sertoli hücreleri39 ve toksikanlara maruz kalmış immatür sıçan testisleri40 dahil olmak üzere hasarlı testis modellerinde artış göstermektedir. Spermatogenezde, mitokondriyal otofaji, apoptoz ve programlı hücre ölümünün diğer modlarıyla ilişkilidir ve böylece testisteki sperm üretimini etkiler41,42.
Bibliyometrik bağlam
Web of Science Core Collection üzerinde 1970'ten 2023'e kadar olan dönemi kapsayan, “spermatogenesis” ve “MQC” arama terimleri kullanılarak odaklanmış bir bibliyometrik analiz gerçekleştirildi; memeli olmayan çalışmalar ve ilgisiz kayıtlar hariç tutuldu ve görselleştirme için VOSviewer 1.6.20 kullanıldı43. Tarama sonrasında, 66 ülkeden 1.217 kurumdan 1.019 makale ve 5.705 yazar dahil edildi. Yayınlar istikrarlı bir şekilde arttı (Şekil 2A). Amerika Birleşik Devletleri ve Çin en fazla makale katkısını sağladı (sırasıyla 212 ve 196) ve en yüksek atıf sayısına Amerika Birleşik Devletleri sahipti (12.295; Şekil 2B). Kurumsal ve yazar ağları Şekil 2C,D'de özetlenmiştir.
Anahtar kelime ortak oluşum analizi (frekans > 7); sperm motilitesi, oksidatif stres, apoptoz/programlı hücre ölümü, DNA hasarı, lipid peroksidasyonu ve sperm kalitesinin vurgulandığını göstermiştir (Şekil 3). Bu bibliyometrik modeller, mekanistik incelemeyi desteklemekle birlikte onun yerini tutmamaktadır: alan, oksidatif hasar ve motilite sonuçları etrafında yoğunlaşmışken, evreye özgü MQC yolaklarını infertilite ile ilişkilendiren doğrudan insan kanıtları sınırlı kalmaya devam etmektedir.
Sonuçlar
Biyoteknolojideki ilerlemelerle birlikte, erkek fertilitesi üzerine yapılan araştırmalar, tanımlayıcı morfoloji ve motiliteden spermatogenezin moleküler ve hücresel mekanizmalarına doğru kaymıştır. Mitokondriler bu sürecin merkezindedir: ATP üretirler, mayoz ve spermiyogenez sırasında yeniden şekillenmeyi desteklerler ve oksidatif ile çevresel hasarlara karşı oldukça hassastırlar44. Bu tür stresler altında işlevselliği sürdürmek için mitokondriler; biyogenez, füzyon-fisyon dinamikleri ve mitofajiyi entegre eden MQC'ye güvenirler. Bu yolakların bozulması, germ hücresi gelişimini, sperm orta parça mimarisini ve nihayetinde fertiliteyi bozar. Sonuç olarak, mevcut kanıtlar; mitokondriyal dinamiklerin ve mitofajinin, spermatogenez sırasında enerji üretimini, organel yeniden şekillenmesini ve hasarlı bileşenlerin temizlenmesini koordine etmeye yardımcı olduğu evreye özgü bir modeli desteklemektedir. Bununla birlikte, doğrudan insan kanıtları ve standardize edilmiş fenotiplendirme sınırlı kalmaya devam etmektedir; bu nedenle MQC ile ilişkili proteinler, kesinleşmiş terapötik hedeflerden ziyade, daha fazla doğrulama gerektiren aday araştırma hedefleri olarak görülmelidir.
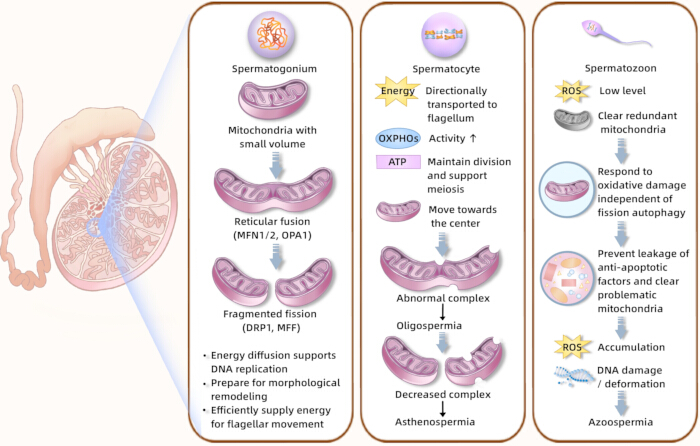
Şekil 1Spermatogenez sırasında mitokondriyal kalite kontrol mekanizması. Spermatogenezde evreye özgü enerji metabolizması ve mitokondriyal yeniden şekillenme. Şema; Sertoli-germ hücresi metabolik eşleşmesini, glukoz taşıyıcılarını, monokarboksilat taşıyıcılarını, ATP üretimini, mayoz ve spermiyogenez sırasında glikoliz destekli metabolizmadan oksidatif fosforilasyona geçişi ve reaktif oksijen türleri kaynaklı mitokondriyal hasarı göstermektedir. Kısaltmalar: ATP = adenozin trifosfat; OXPHOS = oksidatif fosforilasyon; ROS = reaktif oksijen türleri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
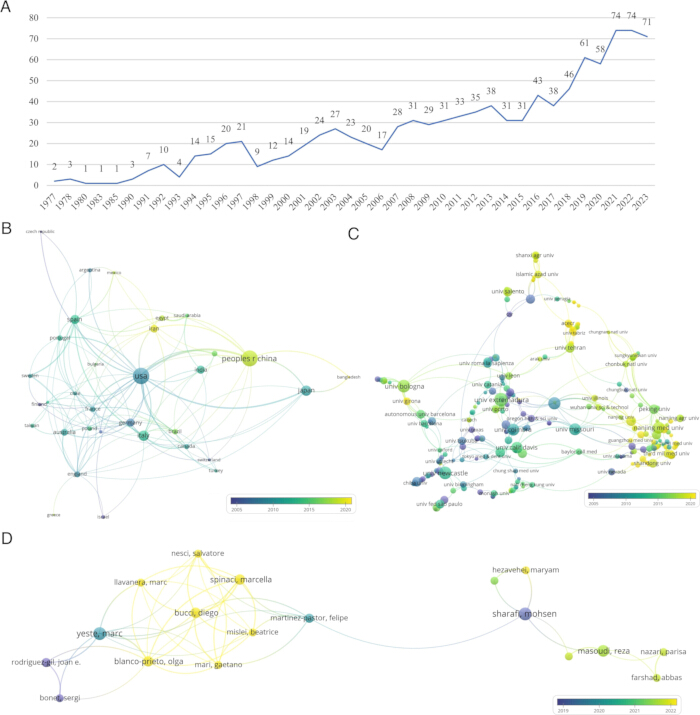
Şekil 2. Ulusal, kurumsal, yazar yayınları ve iş birliği analizi. (A) Spermatogenez ve MQC alanındaki yıllık yayın sayısı. (B) Spermatogenez ve MQC alanındaki uluslararası iş birliği yayınlarının zamansal dağılım haritası. (C) Spermatogenez ve MQC alanındaki kurumsal iş birliklerinin zamansal dağılım haritası. (D) Spermatogenez ve MQC alanındaki yazar yayınlarının zamansal dağılım haritası. Düğümler yayın sayısını; düğüm rengi ise eskisinden daha yeniye doğru yayın zamanını göstermektedir; çizgiler iş birliği ilişkilerini temsil etmekte olup, daha kalın çizgiler daha yakın iş birliğini belirtmektedir. Kısaltma: MQC = mitokondriyal kalite kontrol. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
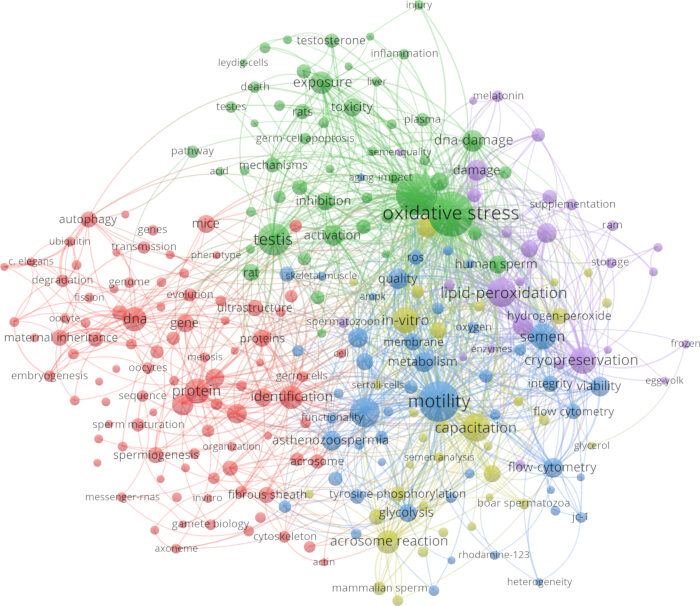
Şekil 3. Yüksek frekanslı anahtar kelime eş oluşum grafiği. Düğümler yüksek frekanslı anahtar kelimeleri temsil eder; düğüm boyutu frekansı gösterir; düğüm rengi kümelenmeyi belirtir ve aynı renk birbirleriyle daha yakından ilişkili konuları gösterir; çizgiler ise anahtar kelimeler arasındaki ilişkileri temsil eder ve daha kalın çizgiler daha yakın ilişkileri belirtir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| MQC süreci | Hedef protein |
| Mitokondriyal füzyon | Optik atrofi 1 (OPA1) |
| Mitofusin 1 (MFN1) | |
| Mitofusin 2 (MFN2) | |
| Mitokondriyal fisyon | Dinamin ilişkili protein 1 (DRP1) |
| Mitokondriyal bölünme 1 proteini (FIS1) | |
| Mitokondriyal fisyon faktörü (MFF) | |
| Mitofaji | PTEN-indükli varsayılan kinaz 1 (PINK1) |
| Ubikitin-protein ligaz Parkin (E3 ubikitin-protein ligaz Parkin) |
Tablo 1: Mitokondriyal kalite kontrolündeki temel hedef proteinler. Tablo, spermatogenez sırasında mitokondriyal füzyon, mitokondriyal fisyon ve mitofaji süreçlerinde yer alan temsili proteinleri listelemektedir.
Açıklamalar
Yazarların beyan edecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu çalışma; Ningxia Doğal Bilimler Vakfı Projesi (2025AAC030481, 2024AAC03715), Çin Ulusal Doğal Bilimler Vakfı (82560939, 82505601), Ningxia Temel Araştırma ve Geliştirme Programı (2025FRG05005, 2025BEG2008), Pekin Doğal Bilimler Vakfı (7254520), Çin Doktora Sonrası Bilim Vakfı (2025T181076), Çin Bilim ve Teknoloji Birliği Genç Seçkin Bilim İnsanları Destek Programı (YESS20240193), Çin Geleneksel Tıp Birliği Genç Yetenek Destek Programı (CACM-2024-QNRC2-B17) ve Ulusal Geleneksel Çin Tıbbı İdaresi Geleneksel Çin Tıbbı Üst Düzey Temel Disiplin Kurulum Projesi (zyyzdxk-2023238) tarafından desteklenmiştir.
Kaynaklar
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.