İki raporlayıcı stratejiye uygulanan konfokal görüntüleme ve takip boru hatlarını açıklıyoruz: bireysel hücre davranışını çözmek için mozaik organoidler ve insan ve fare bağırsak organoidlerinde hücre tipi geçişlerini izlemek için fate reporter organoidler.
Yöntem makalesi
İnsan ve fare bağırsak organoidlerinde klonal dinamikleri ve kader geçişlerini izlemek için canlı hücre görüntüleme ve tek hücreli takip
* These authors contributed equally
Bu makalede
Özet
Özet
Bağırsak epiteli, kök hücre bölünmesi, hücre farklılaşması ve göç yoluyla hızlı bir şekilde kendini yeniler. Bireysel hücrelerin belirli kaderlere nasıl bağlandığını ve bu dokuda klonal dinamiklerin nasıl ortaya çıktığını anlamak, hücresel davranışı gerçek zamanlı ve tek hücre çözünürlükte yakalayan yöntemler gerektirir. Bağırsak organoidleri, epitelyal öz-organizasyon ve hücre tipi çeşitliliğinin temel özelliklerini özetleyerek bu süreçleri kontrollü bir ortamda incelemek için güçlü bir sistem haline getirir. Burada, insan ve fare bağırsak organoidlerinde uzun vadeli konfokal canlı hücre görüntüleme (72 saate kadar) ve tek hücreli takip için iki tamamlayıcı raporlayıcı stratejisi etrafında inşa edilmiş bir protokol sunuyoruz. İlk olarak, farklı olarak etiketlenmiş hücre popülasyonlarını birleştirerek mozaik organoidlerin oluşumunu tanımlıyoruz; böylece yoğun epitelde bireysel hücrelere atfedilemeyen membran lokalize ve sitoskelet raporlayıcılarının tek hücre çözünürlüğü sağlanır. İkinci olarak, hücre tipine özgü kader raporlayıcıları (goblet hücreleri için MUC2, Paneth hücreleri için DEFA5) kullanıyoruz ve sekresi hücre tipi geçişlerini gerçek zamanlı olarak izliyoruz. Protokol, organoid kültürü, mozaik organoid oluşumu, fototoksisiteyi en aza indirme stratejileri içeren örnek hazırlama, birkaç gün süren görüntü alımı ve hücre yörüngelerini ve soylarını zamanla yeniden inşa eden OrganoidTracker kullanılarak yarı otomatik tek hücre takibi kapsar. Bağırsak organoidlerinde kanıtlanmış olsa da, bu çerçeve mide, pankreas ve kolon modelleri dahil olmak üzere diğer epitel organoid sistemlerine kolayca uyarlanabilir ve epitel biyolojisi, homeostaz ve hastalık çalışmalarında faydasını genişletir.
Giriş
Bağırsak epitel, vücuttaki en hızlı kendini yenileyen dokulardan biridir ve çoğu hücre üç ila beş gün içinde yenilenir. Bu sürekli dönüşüm, bağırsak kriptlerinin tabanında bulunan Lösin açısından zengin tekrarlayan G-protein bağlantılı reseptör 5 (Lgr5)-pozitif kök hücreler tarafından sürdürülür; bu hücreler, villusucu 1'e doğru hareket ederken bağırsak örtüsünün özel hücre tiplerine ayrılan geçiş amplifikasyon adyacıları oluşturur. Başlıca farklılaşmış soylar arasında emdirici enterositler, mukus salgılayan kadeh hücreleri, hormon üreten enteroendokrin hücreler ve antimikrobiyal Panethhücreleri yer alır 2. Bireysel hücrelerin belirli kaderlere nasıl bağlandığı, bireysel hücre dinamiklerinden kolektif hücre davranışının nasıl ortaya çıktığı ve doku düzeyinde koordinasyonun nasıl sağlandığı bağırsak biyolojisinde temel sorular olarak kalmaktadır. Bu soruların yanıtlanması, hücresel davranışı tek hücre çözünürlükte, gerçek zamanlı ve farklılaşma ile göçle ilgili zaman ölçeklerinde yakalayan deneyselyaklaşımlar gerektirir 3.
Bağırsak organoidleri, tek kök hücrelerden veya doku parçalarından yetiştirilen üç boyutlu (3D) kendi kendini organize eden yapılar, epitel mimarisinin, öz-organizasyonun ve hücre tipi çeşitliliğinin temel yönlerini özetler 4,5,6. Gelişimlerinden bu yana, organoidler bağırsak biyolojisi, hastalık modellemesi ve ilaç yanıtlarını incelemek için vazgeçilmez bir araç haline gelmiştir. Hem fare hem de insan bağırsak organoidleri kültürde uzun vadeli olarak tutulabilir, Kümelenmiş Düzenli Aralıklı Kısa Palindromik Tekrarlar (CRISPR) tabanlı yaklaşımlarla genetik olarak değiştirilebilir ve farklı genotiplere veya raporlayıcı arka planlara sahip ayrışmış tek hücrelerin karıştırılmasıyla mozaik yapılara birleştirilerek bazaz membran ekstraktı 7,8,9. Mozaik organoidler, farklı genetik veya floresan arka planlara sahip hücreleri tek bir yapı içinde birleştirir; böylece popülasyonlar aynı niş sinyalleri ve mekanik bağlamı deneyimler ve yerleşik iç kontrollerle karşılaştırılabilir. Bu genetik yönetilebilirlik, onları özellikle belirli hücre popülasyonlarının hassas etiketlenmesinigerektiren canlı görüntüleme çalışmaları için uygun kılar 6,10,11,12. Hücre tipine özgü kader belirteçleri gibi hücreleri sporadik olarak etiketleyen muhabirler, tek hücre izleme yöntemleriyle tek izlenebilen ve analiz edilebilen izole floresan hücreler üretir. Ancak, membran lokalizasyonuna sahip ve sitoskelet proteinleri, örneğin hücre birleşimleri veya kortikal Myosin-II, epitelyum boyunca eşit şekilde etiketlendiğinde, kalıcı bir zorluk ortaya çıkar. Sinyalleri bireysel hücrelere atanamaz çünkü komşu hücreler konfokal mikroskopi çözünürlüğünde sınırlarını paylaşır. Mozaik organoidler bu sınırlamayı aşır: floresan bir muhabirini ifade eden bir hücre etiketlenmemiş komşularla çevriliyse, zar ve sitoskelet sinyalleri kesin olarak o hücreye atfedilebilir ve göç, bölünme veya ekstrüzyon sırasında sitoskeletini nasıl yeniden şekillendirdiğiniortaya çıkarır 9,13. Etiketleme oranı ayarlandığında bu görünüm tersine çevrilir ve etiketlenmemiş bir hücrenin çevresindeki komşuluk yanıtının yakalanmasına izin verilir. H2B-mCherry veya H2B-iRFP gibi histon H2B nükleer muhabirleri, mozaik desenini tanımlamak ve analiz için bilgilendirici hücre takımyıldızlarını bulmak için araçlar olarak hizmet verir. Tek hücre çözünürlüğünün ötesinde, mozaik organoidler genotipler arasında doğrudan uygunluk karşılaştırmalarını da mümkün kılar: her iki popülasyon aynı nişi paylaştığı için, hücre ömrü veya ekstrüzyon oranındaki farklılıklar rekabetçifitness 9,14,15'in iç kontrollü bir göstergesini sağlar.
Ancak organoidlerin canlı hücre görüntülemesi özel teknik zorluklar getirir. 3D geometrileri, optik kesitleme için konfokal veya ışık tabakasımikroskopisi gerektirir 16,17,18,19. Farklılaşma ve göç gibi yavaş süreçleri yakalamak, fototoksisiteyi sınırlamak için lazer gücü, pozlama süresi ve görüntüleme aralıklarının dikkatli optimize edilmesi ile 24 saat veya daha fazla görüntüleme süresi gerektirir16,18. Gömüleme matrisi ve kültür ortamı, organoid sağlığı desteklerken mikroskop optikleriyle uyumlu kalmalıdır. Ayrıca, yoğun 3D zaman geçişli veri setlerinden nicel tek hücre bilgisi çıkarmak, hücreleri yüzlerce zaman noktası boyunca tespit edip bağlamak için özel hesaplama araçları gerektirir. Konfokal mikroskopi ve ışık tabakası mikroskopinin ötesinde, çoklu foton mikroskopisi ve floresans ömür boyu görüntüleme mikroskopisi (FLIM), azaltılmış fototoksisite ve etiketsiz metabolik okumalar gibi ek olanaklarsunar 20,21; ancak konfokal mikroskopi, floresan etiketli organoidlerin çok renkli canlı görüntülemesi için en yaygın erişilebilir ve çok yönlü platform olmaya devam etmektedir.
Organoidlerde hücreleri izlemek için manuel notasyondan yarı otomatik ve tam otomatik derin öğrenme tabanlı boru hatlarına kadar çeşitli yaklaşımlargeliştirilmiştir 22. OrganoidTracker, sinir ağlarını kullanarak 3D konfokal yığınlarda çekirdekleri tespit eden ve tespit edilen zaman noktaları arasında tespit edilen, hücre yörüngelerini ve soy ağaclarını yeniden inşa eden yarı otomatik bir yazılımaracıdır 3,23. Bağırsak organoidlerinde birkaç gün boyunca yüzlerce hücreyi takip etmek için doğrulanmış ve hücre bölünmesi, göçü, farklılaşma ve ekstrüzyon olaylarını nicelendirmek için esnek bir çerçeve sağlar. Çok kanallı görüntüleme desteği, hem spektral olarak farklı nükleer habercileri taşıyan mozaik organoidler hem de hücre tipine özgü kader belirteçlerini ifade eden organoidlerle doğrudan uyumlu hale getirir.
Bu protokolde, insan ve fare bağırsak organoidlerinde konfokal canlı hücre görüntüleme ve tek hücre takibi ile iki tamamlayıcı raporlayıcı stratejisini entegre eden modüler bir iş akışını tanımlıyoruz. İlk strateji, belirli oranlarda farklı H2B nükleer raporlayıcıları (H2B-mCherry ve H2B-iRFP) taşıyan iki hücre popülasyonunun karıştırılmasıyla üretilen mozaik fare organoidlerini kullanır (Şekil 1A). Bir popülasyon ayrıca, Myosin-II-mNeonGreen gibi ilgi çekici bir muhabir taşır; bu muhabir zar lokalize sinyal, çevresi sadece ikinci nükleer etiketi taşıyan komşularla çevrili olan bireysel hücrelere açıkça atfedilebilir. Bu, tek bir hücrenin göç, bölünme veya ekstrüzyon sırasında sitoskeletini nasıl yeniden şekillendirdiğinin doğrudan gözlemlenmesini sağlar. İkinci strateji, insan bağırsak organoidlerinde hücre tipine özgü kader raporlayıcılarını kullanır; kadeh hücrelerini etiketlemek için Mucin 2 (MUC2) ve Paneth hücrelerini etiketlemek için Defensin Alpha 5 (DEFA5) kullanılır; böylece sekretör hücre tipi geçişlerinin gerçek zamanlı izlenmesini sağlar (Şekil 1B). Bu iki sistem birlikte, paylaşılan görüntüleme ve takip hattının çeşitli biyolojik sorulara sadece muhabir stratejisi değiştirilerek nasıl uyarlanabileceğini gösterir (Şekil 1C,D). Takip eden bölümler, organoid kültüründen mozaik üretimine, görüntü alımına ve nicel tek hücre analizine kadar bu iş akışını uygulamak için gereken tüm adımları sunmaktadır.
Protokol
Hayvanlarla ilgili tüm deneyler, Hollanda hükümetinin Hayvan Deneyleri Merkez Komitesi (CCD) ve KNAW/Hubrecht Enstitüsü Hayvan Refahı Kurumu (IvD) tarafından onaylanan kurumsal yönergelere uygun olarak gerçekleştirilmiştir. İnsan bağırsak organoidleri, Utrecht Üniversitesi Tıp Merkezi (UMCU)'da bilgilendirilmiş hasta onayı ile alınan hasta dokusundan üretilmiştir. Çalışma, UMCU etik komitesi (Utrecht, Hollanda) tarafından onaylanmış ve Helsinki Bildirgesi ile Hollanda yasalarına uygun şekilde yürütülmüştür.
1. Organoid kültürü ve bakımı
- Farenin bağırsak organoidleri için epidermal büyüme faktörü, Noggin ve R-spondin (ENR) büyüme ortamı hazırlayın (Tablo 1).
- İnsan bağırsak organoidleri için Genişleme Ortamı (Tablo 2), Desenleme Ortamı (Tablo 3) ve Olgunlaşma Ortamı (Tablo 4) Hazırlayın.
- Büyüme faktörü azaltılmış bazaz membran ekstraktı (BME) şişesini bir gece boyunca buzda eritin.
- Erken jelleşmeyi önlemek için BME'yi her zaman buzda tutun.
- ENR ortamında kültür faresi bağırsak organoidleri, mekanik ayrışma ile 1:4 ile 1:8 oranında bir 7 günde bir geçiş yapar.
- İnsan bağırsak organoidleri BME'ye gömülü Genişleme Ortamında kültürlenir, her 7–10 günde bir geçer5.
NOT: Tek hücre ayrışması sonrası fare organoidlerinin genleşmesi veya geri kazanılması için, organoid büyümesini ve canlılığı teşvik etmek amacıyla ilk 2–3 gün boyunca Wnt ile koşullandırılmış ortamla (10 mM nikotinamid ve 10 μM Y-27632 dihidroklorür takviyesi) ENR ortamında kültür uygulanır. - İnsan bağırsak organoidlerinin farklılaşmasını sağlamak için, organoidleri 14 gün boyunca Kalıplama Ortamında ardışık olarak kültürlendirin, ardından 7–10 gün boyunca OlgunlaşmaOrtamı uygulanır. 6.
NOT: Organoidlerin yerleşimi ve kültürü için ayrıntılı protokoller için, fare bağırsak organoidleri için Sato ve ark.4, insan bağırsak organoidleri için Sato ve ark.5 ve He ve ark.6'ya bakınız.
2. Transjenik bağırsak organoidlerinin üretimi
- Elektroporasyon sırasında aktif olarak çoğalan kültürleri sağlamak için geçiş organoidleri: fare organoidleri için elektroporasyondan üç gün önce, insan organoidleri için ise beş ila yedi gün önce. Her elektroporasyon reaksiyonu için, 24 kuyuluğa sahip bir plakanın 4–8 kuyumundan alınan organoitler kullanılır (yaklaşık 200–400 μL BME içeren organoid içerir, yaklaşık 500–1.000 organoid elde edilir). Rekombinant tripsin benzeri dissosiyasyon reaktifiyle organoidleri tek hücrelere ayırın, 37 °C'de 5–10 dakika boyunca.
- Nükleer raporlayıcı organoid hatları, transpozon tabanlı ifade yapısını (p2T-H2B-mCherry-IRES-BlastR veya p2T-H2B-iRFP-IRES-PuroR; her biri 5 μg) ve transpozaz vektörünü (p2T-CAG-mT2TP; 5 μg) yerleşik protokollere uygun elektroporasyon sistemi kullanarak dissosiyasyon hücrelerine birlikte elektroporasyon sistemiile birlikte üretin. 24.
NOT: 2.2. adımda belirtilen plazmid DNA miktarları (yapı başına 5 μg) elektroporasyon reaksiyonu başına yaklaşık 500–1.000 organoid için optimize edilmiştir. Elektroporasyon sırasında, elektroporatör tarafından ölçülen empedansın 25–55 Ω arasında olduğunu doğrulayın. 25 Ω altında empedans aşırı hücre yoğunluğu veya tampon iletkenliği sorunlarını gösterir; 55 Ω üzerindeki empedans, hücre sayısının yetersizliğini veya hücre canlılığının düşük olduğunu gösterir. Empedans bu aralığın dışında olursa hücre konsantrasyonunu ayarlayın veya elektroporasyon tamponunu değiştirin. - Elektroporasyondan sonra, kültür hücreleri Wnt ile koşullandırılmış ortamda 3 gün boyunca 10 μM Y-27632 dihidroklorür takviyesi ile takviye edilip, hücre iyileşmesi ve organoid yeniden oluşmasını desteklemiştir.
- Elektroporasyondan bir hafta sonra aşırı ifade yapıları için antibiyotik seçimine başlamaya başlayın (H2B-iRFP hatları için puromisin (2 μg/mL) veya H2B-mCherry hatları için blastisidin (10 μg/mL)) böylece yeterli geri kazanım sağlanması sağlanır.
- İki hafta boyunca sürekli seçim yapmaya devam edin.
- Uygun filtre setleriyle epifloresans donanımlı stereo mikroskop altında floresan organoid klonları seçin.
- Seçilmiş klonları rekombinant tripsin benzeri dissosiyasyon reaktifiyle tek hücrelere ayırın ve ENR ortamına geçişten önce iki hafta boyunca Wnt ile koşullandırılmış ortamda genişletin.
- Floresan sinyalin ve geçişler boyunca stabil ifadenin eşit nükleer lokalizasyonunu doğrulayarak raporlayıcı hatlarını doğrulayın.
- Raporlayıcı tanıtımının, etiketlenmemiş ebeveyn hatlarıyla karşılaştırıldığında organoid büyüme hızını, morfolojisini veya farklılaşma kapasitesini değiştirmediğini doğrulayın.
- Membran lokalize veya sitoskelet proteinlerinin okumalarını mümkün kılmak için, ilgi çekici bir floresan raporlayıcıyı (örneğin, mNeonGreen ile etiketlenmiş Myosin-II) H2B nükleer raporlayıcı ile aynı organoid çizgide birlikte eksprese edin.
NOT: Yerleşik H2B raporlayıcı organoid hatları genişletilebilir ve kriyopreserve edilebilir. Bu çizgiler, sonraki mozaik deneyleri için çok yönlü bir temel oluşturur: aynı H2B etiketli arka plana ek raporlayıcılar veya genetik mutasyonlar eklenerek Bölüm 4'te tanımlanan mozaik iş akışıyla uyumlu bir çizgi kütüphanesi oluşturulabilir.
3. Endojen kader raporlayıcısı insan bağırsak organoidlerinin üretimi
- Artegiani ve ark.7'de tanımlandığı gibi, insan bağırsak organoidlerinde CRISPR aracılı homoloji-bağımsız hedefli entegrasyon (CRISPR-HOT) kullanarak MUC2 floresan knock-in raporlayıcısı oluşturulur.
- İnsan bağırsak organoidlerinde DEFA5 floresan knock-in raporlayıcısını homoolojiye yönlendirilmiş onarım (HDR) ile He ve ark.6'da tanımlandığı gibi üretin
NOT: CRISPR-HOT (adım 3.1) ve HDR (adım 3.2) endogen knock-in muhabirleri üretir. - Her iki raporlayıcı ifadesini, sırasıyla MUC2 ve DEFA5 için floresan sinyalin antikor boyama ile birlikte lokalizasyonunu doğrulayarak doğrulayın.
- Raporlayıcı tanıtımının organoid büyümesi, morfolojisi veya farklılaşma kapasitesini değiştirmediğini doğrulayın.
NOT: CRISPR-HOT yaklaşımı, kader belirteçlerinin ötesinde geniş çapta uygulanabilir ve hem insan hem de fare organoidlerinde Myosin-II, E-kadherin veya ZO-1 gibi membran lokalizasyonlu ve sitoskelet proteinleri için endogen floresan raporlayıcılar üretmek için kullanılabilir.
4. Mozaik organoidlerin üretimi
- Mozaik organoid oluşumundan üç gün önce, her iki organoid hattını Wnt ile koşullu ortama geçirerek kök hücre genişlemesini teşvik eder ve ayrışma sırasında hücre canlılığını en üst düzeye çıkarır.
- Mozaik üretim gününde, 48 kuyuluğa ait bir plakanın her kuyusunu 20 μL %5 BME ile DMEM ile kaplayın; böylece hücre tutması için ince bir yapışkan tabakası sağlanır. 37 °C'de 1 saat kuluçka yapın.
- BME'yi buz gibi soğuk baz ortam ekleyerek çözün ve her hatttan organoidleri ayrı ayrı toplayın; 300 × g sıcaklıkta 5 dakika boyunca 4 °C'de santrifüjle yapılsın. Organoidleri 37 °C'de su banyosunda 5–7 dakika boyunca enzimatik hücre ayrılması çözeltisinde inkubasyon yoluyla tek hücrelere ayırın. Mekanik ayrışmayı kolaylaştırmak için süspansiyonu tekrar tekrar bir P1000 pipeti ile pipetleyin. Dissosiyasyonu parlak alan mikroskopu altında izleyin ve çoğunlukla tek hücreler veya 2–10 hücrelik küçük organoid parçalar göründüğünde fazla buz soğukluğu baz ortamı ekleyerek reaksiyonu durdurun.
- Pellet hücreleri 300 × g sıcaklıkta 4 °C'de 5 dakika boyunca santrifüjle yapılır. İÇERİ OPTER: Her hücre süspansiyonunu 40 μm hücre süzgeciyle filtreleyerek kalan kümeler, hücre kalıntıları ve BME jel parçalarını çıkarabilirsiniz.
NOT: Bu, temiz bir hücre süspansiyonu sağlar, mozaik homojenliğini artırır ve önceden oluşmuş hücre kümelerinden kaynaklanan büyük klonal yamaların riskini azaltır. Hücre popülasyonları arasında daha büyük sınırlar oluşturmak için filtreleme önerilmez. - Trypan mavisi dışlanmasını kullanarak hücre canlılığını değerlendirin ve canlı hücreleri sayın. İki hücre popülasyonunu istenen oranda (örneğin, 1:1, 1:3 veya 1:9) birleştirerek 500 μL Wnt ile koşullandırılmış ortamda toplam 300.000 hücreye ulaşın; bu ortam 10 μM Y-27632 dihidroklorür ile takviye edilir. Nazik pipetle iyice karıştırın.
NOT: Karıştırma oranı analiz türünü belirler: düşük raporlayıcı-etiketlenmemiş oranı (örneğin, 1:9), etiketlenmemiş komşular arasında bireysel etiketlenmiş hücreleri izole eder ve zar ile sitoskelet sinyallerinin tek hücrelere net atfedilmesini sağlar. Yüksek bir raporlayıcı hücre oranı (örneğin, 9:1) bu görünümü tersine çevirir ve etiketlenmemiş bir hücrenin çevresindeki komşuluk yanıtının yakalanmasına olanak tanır. - Hücre süspansiyonunu kaplı 48 kuyu plakaya tohumlayın. Plakayı 200 × g sıcaklıkta oda sıcaklığında 5 dakika santrifüjle edin ve 37 °C'de kuluçka yapın.
- 24 saat sonra, hücre katmanını mekanik olarak ayırın; P200 pipet ucu ile kazıyıp buz gibi soğuk temel ortamla veya hücre kazıyıcı ile iyice yıkayın. Ayrılmış agregaları 300 × g sıcaklıkta, 4 °C'de 3 dakika boyunca santrifüjle toplayın, ek mekanik kesme yapmadan. BME ve plakadaki agregaları görüntüleme uyumlu örnek taşıyıcılara yeniden askıya alın. Kültür ENR ortamında.
NOT: BME olmadan 2B toplama adımı, iki hücre popülasyonunun tuz ve karabiber dağılımıyla iyi karışık mozaik organoidler üretmek için kritiktir. - İnsan mozaik organoidleri için, Wnt ile koşullandırılmış ortam ve ENR'yi insan Genişleme Ortamı ile değiştirin (Tablo 2); Diğer tüm adımlar değişmemiştir.
5. Konfokal canlı hücre görüntülemesi için örnek hazırlama
- Yüksek sayısal açıklıklı (NA) konfokal hedeflerle optik uyumluluk sağlamak için cam tabanlı görüntüleme odaları kullanın (örneğin, yüksek performanslı #1.5 borosilikat kapak kaydırmalı 24 kuyuklu cam taban plaka).
- Organoid-BME süspansiyonunu, cam tabanın merkezine yakın ince bir kubbe (≤30 μL kuyu başı) olarak kaplamak. 37 °C'ye aktarmadan önce, organoidlerin BME jelasyonundan önce yerçekimiyle cam tabana doğru batmasını sağlamak için plakayı 4 °C'de 5–10 dakika kuluçka edin.
NOT: Bu, organoid ile kapak arasındaki çalışma mesafesini azaltır ve ters mikroskoplarla görüntü kalitesini en üst düzeye çıkarır. - 37 °C'ye aktarın ve BME'nin 20–30 dakika katılaşmasına izin verin. Sonra 24 kuyu başına 500 μL önceden ısıtılmış büyüme ortamı ekleyin. Organoidlerin plaka yapıldıktan sonra en az 24 saat boyunca iyileşmesine ve morfolojisini belirlemesine izin verin, ardından canlı görüntülemeye başlamak.
- Uzun süreli görüntüleme sırasında buharlaşmayı en aza indirmek için, nemlendirilmiş bir aşama üstü kuluçka odası kullanın. Numuneyi, görüntülemeden önce 1–2 saat önce mikroskop aşamasına yerleştirin; böylece termal denge sağlanır ve alım sırasında Z-sürüklenmesi en aza indirilir.
- Sahne üstü kuluçka makinesinin görüntüleme boyunca 37 °C ve %5 CO₂ oranını korumasından emin olun.
- Cam tabana yakın (örtü kaymasından ≤50 μm uzaklıkta) bulunan organoid seçilmiş, sağlıklı morfolojiye sahiptir: fare organoidleri için net kripta tomurcuklama mimarisi veya insan organoidleri için kistik tomurcuklama yapısı. BME'nin derinliklerinde konumlandırılan organoidlerden kaçının, çünkü sinyal kalitesi ve takip doğruluğu görüntüleme derinliğiyle birlikte önemli ölçüde azalır.
NOT: Hem BME'de hem de kültür ortamında fenol kırmızısı varlığı, bu protokolde kullanılan floresan raporlayıcılar (H2B-mCherry, H2B-iRFP, MUC2-mNeonGreen ve DEFA5-dsRed) güvenilir nükleer algılama ve tek hücre takibi için yeterli sinyal-gürültü oranı ürettiği için önemli otofloresans veya görüntüleme artefaktlarına neden değildir. Ancak, daha zayıf raporlayıcılar veya ek floresan kanallar kullanan deneyler için, fenol kırmızısı olmayan BME ve kültür ortamına geçmek faydalı olabilir.
6. Konfokal görüntü edinimi
- Kullanılan floroforlar için uygun lazer taramalı konfokal mikroskop kullanın; sahne üstü kuluçka makinesi (37 °C, %5 CO₂), motorlu Z-sürücü ve lazer hatları ile donatılmıştır.
- Deneysel gereksinime göre hedefi seçin. BME'nin derinliklerine görüntülemek için 0.62 mm çalışma mesafesi olan 40×/1.10 NA su battırma objektîfini kullanın. Çok organoid veya geniş görüş alanı edinimi için 0,62 mm çalışma mesafesi olan 20×/0.75 NA hava hedefini kullanın.
NOT: Daha yüksek NA, ışık toplama, çözünürlük ve optik kesitleri iyileştirir, bu yüzden 40×/1.10 su daldırma nesnesi BME'nin daha derinlerinde ince detayları çözürken, daha yüksek büyütme alanı bir veya birkaç organoidle sınırlar. 20×/0.75 hava hedefi daha az ışık toplar ve daha az kesitler oluşturur, ancak daha geniş alanı tek bir edinimde birçok organoidi yakalar, bu da onu popülasyon ölçeğinde veya çoklu konumlu görüntüleme için daha iyi bir tercih yapar. - Numune ve daldırma ortamının, toplamaya başlamadan önce en az 1–2 saat boyunca mikroskop aşamasında termal dengeye geçmesine izin verin (adım 5.8).
- İlk birkaç zaman noktasında tüm pozisyonlarda odak doğrulayın ve drift birikmeden önce herhangi bir pozisyonu manuel olarak düzeltin.
NOT: Odak kaybı ve görüntü kayması, uzun vadeli konfokal satın almalar sırasında yaygın zorluklardır ve aktif olarak yönetilmelidir. Suya batma hedefleri için, suyun kendisi yerine su yerine su ile eşleşen kırılma indeksi (n = 1.333) olan bir daldırma yağı kullanın; böylece buharlaşma ortadan kaldırılırken suya daldırmanın optik özellikleri korunur. - Her florofor için uyarılma ve emisyon ayarlarını yapılandırın. Çapraz kananmayı en aza indirmek için, floresans kanallarını aynı anda değil, ardışık olarak alın, böylece aynı anda sadece bir lazer hattının aktif olmasını sağlayın. Kanal ayrımı koruyarak zaman noktası başına toplam alım süresini azaltmak için çift yönlü ardışık tarama kullanın.
NOT: Yalnızca bir raporlayıcıyı ifade eden tek renkli kontrol organoidleri ekleyin; böylece kalıntı çapraz sızma miktarını ölçebilir ve gerekirse spektral karıştırma düzeltmeleri uygulanır. - İki renkli fare mozaik organoidleri için, spektral kanama en aza indirmek için uygun emisyon filtreleriyle H2B-mCherry için 561 nm ve H2B-iRFP670 için 638 nm uyarım kullanın. İnsan bağırsak organoidleri için MUC2-mNeonGreen için 488 nm uyarılma ve DEFA5-dsRed için 561 nm uyarılma kullanın.
NOT: Hoechst 33342 gibi canlı nükleer boyalar veya uzak kırmızı-floresan DNA boyası, genetik nükleer belirteçin yerine kullanılabilir; çünkü tespit boru hattı belirli bir florofor yerine nükleer sinyalle çalışır. DNA bağlayan boyalar, özellikle ~400 nm uyarıma sahip Hoechst, tekrar tekrar yapılan aydınlatmada fototoksik ve antiproliferatif hale gelebilir, bu yüzden konsantrasyonları düşük tutun ve uzun süreli canlı görüntüleme için düşük fototoksisiteli uzak kırmızı boyaları tercih edin. - Z-yığını 2 μm aralıklarla 25–35 optik kesit olarak ayarlanır. Zaman aralığını fare bağırsak organoidleri için 5–10 dakika, insan organoidleri için ise 15–30 dakika olarak ayarlayın.
NOT: OrganoidTracker kullanılarak güvenilir nükleer tespit için başlangıç noktası olarak şu ayarları öneriyoruz: 40x su objektefesi, tarama hızı 600 Hz, yakınlaştırma faktörü 0.75×, sonuçta XY'de 0.38 μm piksel boyutu. Bu ayarlar, bireysel çekirdekleri çözmek için yeterli mekansal örnekleme sağlarken, z-yığını başına alım süresini çok pozisyonlu uzun vadeli görüntüleme için kabul edilebilir sınırlar içinde tutar. - Lazer gücünü mümkün olduğunca düşük tutun, ancak çekirdekler net bir şekilde çözülene kadar artırın. Çok pozisyonlu zaman geçişli satın alma işlemini başlatın. Tüm pozisyonlarda zaman noktası başına toplam satın alma süresinin belirlenen zaman aralığının %90'ını geçmediğinden emin olun, böylece aşama hareketi ve otomatik odak ayarlamalarını karşılayın. Biyolojik sorulara bağlı olarak 12–72 saat için görüntü.
NOT: Uzun bir OrganoidTracker çalıştırmasına başlamadan önce, tek bir z-yığını edinin ve tanımlamayı test edinin. Az sayıda kaçırılan veya yanlış tespit ile güvenilir tanımlama, ayarların yeterli olduğunu doğrular. Aksi takdirde, devam etmeden önce lazer gücünü, dedektör kazancını veya z-step'i ayarlayın. MUC2-pozitif kadah hücrelerinin veya DEFA5-pozitif Paneth hücrelerinin ortaya çıkışı gibi farklılaşma olaylarını yakalamak genellikle 48–72 saat gerektirir. Hücre ekstrüzyonu gibi kısa süreli dinamikler 12–24 saat içinde yakalanabilir. Fototoksisite, uzun vadeli görüntüleme için birincil sınırlayıcı faktördür. Belirtiler arasında hücre bölünmesinin yavaşlaması, apoptoz, nükleer yoğuşma ve organoid çökme yer alır (Şekil 2). Görüntülenmemiş kontrol organoidlerinin dahili referans olarak dahil edilmesi önerilir. Gözlemlenirse, lazer gücünü azaltın veya zaman aralığını artırın.
7. OrganoidTracker gibi yarı otomatik organoid hücre takip yazılımı kullanılarak tek hücreli takip ve soy yeniden yapılandırması
- OrganoidTracker'ı https://github.com/jvzonlab/OrganoidTracker'daki talimatlara uygun olarak kurun.
NOT: Yazılım, numpy, scipy, matplotlib ve tensorflow ile Python 3.8 veya daha yeni programları gerektirir. - Zaman geçişi veri setini OrganoidTracker'a yükleyin. Kabul edilen dosya formatları arasında TIFF yığınları, ND2 ve LIF bulunur. Sinir ağı tabanlı çekirdek algılamasını nükleer kanalda çalıştırın (fare organoidleri için H2B-mCherry veya H2B-iRFP).
NOT: Yazılımla birlikte sağlanan önceden eğitilmiş model, H2B etiketli bağırsak organoid çekirdekleri için optimize edilmiştir ve MUC2-mNeonGreen veya DEFA5-dsRed-pozitif hücreleri otomatik olarak tanımlamak için doğrudan uygulanamaz. - Otomatik tespitleri gözden geçirip manuel olarak düzeltin; yanlış pozitiflere (enkaz maddeleri, otofloresan materyal veya çift sayılmış mitotik şekillerde tespitler), yanlış negatiflere (yoğun bölgelerde veya organoid çevresinde kaçan çekirdekler) ve kimlik anahtarlarına (iki hücre yakından geçtiğinde yanlış hücre kimlik atamaları) odaklanın.
- Bağlantı algoritmasını çalıştırarak zaman noktaları arasında tespit edilecek ve hücre yörüngelerini yeniden inşa edilecek. Bağlantıları manuel olarak inceleyin, özellikle hücre bölünme olaylarına (bir izin iki ana ize ayrılması) ve hücre ekstrüzyon olaylarına (bir hücre epitelden ayrılırken iz sonu) dikkat edin.
NOT: Mozaik organoidler için, birincil nükleer kanal üzerinde tespit ve takip yapın, ardından her izlenen hücreyi iki nükleer kanal arasındaki floresans yoğunluk oranına göre A veya B popülasyonuna ait olarak sınıflandırın. - İnsan kaderi raporlayıcı organoidleri takip etmek için yazılımda "Manuel Takip" seçeneğini kullanın. Manuel takip sırasında eklenen hücre merkezi konumu çevresindeki belirli bir yatırım getirisi içindeki ortalama sinyal yoğunluğunu ölçerek raporlayıcı floresansını nicelikle ölçün. Muhabirin yoğunluğunun belirli bir eşiği aştığı zaman noktası, kaderin bağlılığını işaret eder. MUC2-mNeonGreen sinyalinin başlangıcı, kadeh hücre bağlılığını tanımlarken, DEFA5-dsRed sinyalinin başlangıcı Paneth hücre bağlılığını tanımlar.
- Yazılımın kademeli kayıt fonksiyonunu kullanarak takip projesini düzenli olarak kaydedin; bu da düzeltme sürecinin duraklatılabilir ve devam ettirilmesini sağlar. Python veya R ile analiz için takip verilerini (hücre konumları, soy ağaçları ve hücre sınıflandırmaları dahil) dışa aktarın.
8. Hücre Kader Geçişlerinin ve Tek Hücreli Davranışın Nicelendirilmesi
- Hücre tipi geçişlerini nicelikten ölçemek için, her DEFA5-dsRed negatif hücrenin ilk kez DEFA5-dsRed pozitif (Paneth hücre taahhüdü) olduğu zaman noktasını takip etme raporlayıcı kanal yoğunluğuna göre belirleyin. Her takip edilen hücre için, MUC2-mNeonGreen ve DEFA5-dsRed kanallarının floresans yoğunluğunu zaman içinde çıkararak iki muhabir arasındaki zaman ilişkisini izlemek. Bireysel hücreler için çift kanallı yoğunluk izlerini çizerek korelasyonlu raporlayıcı dinamiklerini belirleyin.
NOT: Her iki kanalın aynı anda izlenen hücrelerde izlenmesi, kadeh hücre bağlılığını (sürekli MUC2-mNeonGreen aktivasyonu) ile Paneth hücre bağlılığını (geçici MUC2-mNeonGreen aktivasyonu ve ardından DEFA5-dsRed başlangıç) ayırt etmek için gereklidir. Tek kanallı analiz tek başına bu dinamiği yakalamak için yeterli değildir ve erken Paneth hücresi öncüllerinin kadeh hücreleri olarak yanlış sınıflandırılmasına yol açabilir. - Mozaik organoidlerde, takip edilen her hücre için hücre başına davranışsal metrikler alın; hücre ömrü (son bölünmeden ekstrüzyona veya görüntülemenin sonuna kadar olan süre), bölünme hızı ve göç hızı. İlgi alanındaki ortak ifade edilen bir muhabir varsa, bölünme, göç veya ekstrüzyon gibi belirli olaylarda dinamik değişiklikleri yakalamak için floresans yoğunluğunu zaman içinde niceliklendirin. Bu ölçümleri, etiketlenmiş hücrenin davranışını hemen etiketlenmemiş komşularıyla karşılaştırarak hücrenin yerel komşuluk bağlamına ilişkilendirir.
NOT: Aynı organoidde iki genotip karıştırıldığında, iki popülasyon arasındaki bu metriklerin herhangi birinde sistematik farklılıklar, bir genotipin diğerine karşı rekabetçi uygunluk avantajı olduğunu gösterebilir. - Uygun testlerle istatistiksel analiz yapın. Kader taahhüdü zamanlamasını veya iki grup arasındaki ömür, göç hızı ve bölünme hızı gibi hücre başına metrikleri karşılaştırmak için Mann-Whitney U testini kullanın. Raporlayıcı yoğunluk dinamiklerini zaman içinde karşılaştırmak için, aynı hücre içinde tekrarlanan ölçümleri hesaba katmak için doğrusal bir karışık etki modeli kullanın.
NOT: Tüm nicelendirmeler manuel olarak düzeltilmiş takip verileriyle yapılmalıdır. Düzeltilmemiş veya kısmen düzeltilmiş veri setleri, kader taahhüdü zamanlamasında, mekânsal atamalarda ve davranışsal metrik hesaplamalarda sistematik hatalar getirir. Nicel belirlemeye geçmeden önce manuel düzeltme için yeterli zaman bütçesi yapın (bkz. Bölüm 7).
Sonuçlar
Bölüm 4'te tanımlanan protokole uygun olarak, H2B-mCherry- ve H2B-iRFP etiketli hücre popülasyonları içeren mozaik organoidler, tohumlandıktan sonraki 48 saat içinde oluşur. Başarılı mozaik oluşumu, kullanılan ayrışma derecesine bağlı olarak iki popülasyon arasında tuz ve karabiber dağılımıyla veya tanımlanmış sınırlarla karakterize edilir. Tuz ve karabiber dağılımı, iki popülasyonun rastgele, tek hücreli bir karışımını ifade eder; burada her popülasyonun hücreleri tek hücre düzeyinde serpiştirilmiş ve büyük klonal alanlar yoktur. Buna karşılık, tanımlanmış sınırlar ise aynı organoid içinde her hücre popülasyonunun tutarlı yamalarını oluşturur. Hücre dağılım derecesi, ayrışma aşamasının süresi ve pipetlemenin gücü ile kontrol edilir: kapsamlı tek hücreli ayrışma tuz-karabiber mozaikleri üretirken, hafif parçalanma küçük klonal kümeleri korur (Şekil 3A).
Mozaik etiketleme, eşit şekilde etiketlenmiş dokularda çözülemeyen süreçlerin tek hücreli analizini mümkün kılar. İlgilendiği bir raporlayıcıyı birlikte ifade eden bir hücre (örneğin, floresan Myosin-II muhabir) etiketlenmemiş komşularla çevriliyse, göç, bölünme veya ekstrüzyon sırasında sitoskelet dinamikleri kesin olarak o hücreye atfedilebilir (Şekil 3B). Nükleer H2B raporlayıcıları, mozaik içindeki bilgilendirici hücre takımyıldızlarının tanımlanmasını kolaylaştırır ve hücre başına ölçümler, örneğin ömür, bölünme hızı ve raporlayıcı yoğunluk dinamikleri gibi ölçümler takip verilerinden çıkarılabilir (Şekil 3C). İki genotip karıştırıldığında, bu hücre başına metrikler popülasyonlar arasında karşılaştırılarak rekabetçi uygunluk farklarını değerlendirebilir.
MUC2-mNeonGreen ve DEFA5-dsRed kader muhabirlerini taşıyan insan bağırsak organoidlerinde, sekretor hücre kaderine bağlılık, raporlayıcı floresansın günlerce kademeli bir artışı olarak görülür. Olgunlaşma ortamında kültürlenen organoidler, 7. günde cam taban plakalarına aktarıldı ve konfokal canlı hücre mikroskobu ile görüntülendi (Şekil 4A). Zaman geçişli görüntüleme iki belirgin raporlayıcı dinamiği ortaya koyar: kadeh hücreleri, görüntüleme süresi boyunca yüksek MUC2-mNeonGreen ekspresyonunu aktive eder ve korurken, Paneth hücreleri başlangıçta MUC2-mNeonGreen aktivasyonu gösterir, ardından sinyal azalması ve ardından DEFA5-dsRed aktivasyonu6 gösterir (Şekil 4A). Tek hücreli niceliklendirme, bu ardışık geçişi bireysel hücreler düzeyinde doğrular (Şekil 4B), Paneth hücre bağlılığının doğrudan etiketlenmemiş bir önceden değil, geçici bir MUC2-ekspresyon aralı durum üzerinden ilerlediğini öne sürer. Birden fazla izlenen hücre üzerindeki ortalama yoğunluk eğrileri, bu desenin popülasyon düzeyinde tutarlı olduğunu doğrular; Paneth hücre öncülleri MUC2-mNeonGreen ile DEFA5-dsRed sinyalleri arasında karakteristik bir ters ilişki gösterir (Şekil 4C). Bu veriler birlikte, çift raporlayıcı sistemin tek hücre çözünürlükte farklı sekretör kader yörüngelerini çözdüğünü göstermektedir.
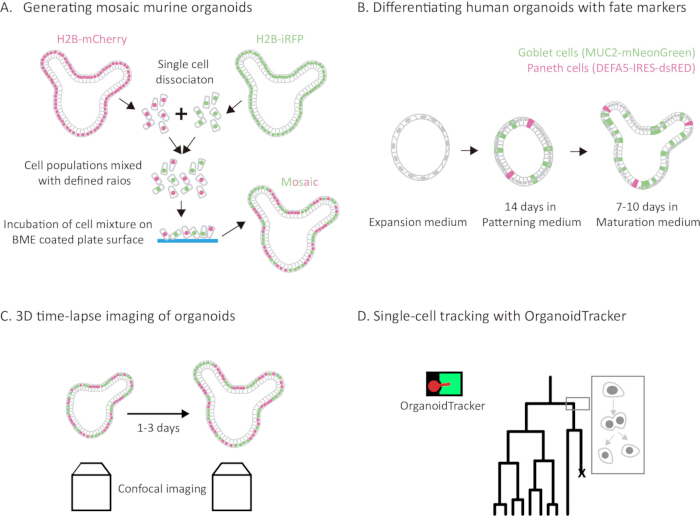
Şekil 1: İnsan ve fare bağırsak organoidlerinde konfokal canlı hücre görüntüleme ve tek hücre takibi ile iki tamamlayıcı raporlayıcı stratejisini entegre eden iş akışı. (A) Mozaik organoid üretim iş akışının şematik genel bakışı. H2B-mKiraz (magenta) veya H2B-iRFP (yeşil) ifade eden fare bağırsak organoidleri, tek hücrelere ayrılır, belirli oranlarda karıştırılır ve BME'ye yeniden gömülmeden önce 24 saat boyunca agaga oluşumu için BME kaplı bir plakaya tohumlanır. (B)İnsan bağırsak organoidlerinin farklılaşmasına dair şematik genel bakış. MUC2-mNeonGreen (kadeh hücreleri, yeşil) ve DEFA5-dsRed (Paneth hücreleri, magenta) endogen knock-in raporlayıcılarını ifade eden insan organoidleri, iki aşamalı bir protokolle farklılaştırılır. Organoidler önce 14 gün boyunca Kalıplama Ortamında kültürlenir, ardından 7–10 gün boyunca Olgunlaşma Ortamı yapılır. Farklılaşma sırasında, organoidler kistik ve küresel morfolojiden, MUC2-mNeonGreen-pozitif kadeh hücreleri ve DEFA5-dsRed-pozitif Paneth hücreleri dahil olmak üzere büyük bağırsak hücre tiplerini barındıran yaygın bir tomurcuklu yapıya geçiş yapar. (C) Nükleer muhabirleri ifade eden bir fare mozaik bağırsak organoidinin 3D zaman geçişli konfokal görüntülemesi. (D) Yarı otomatik organoid hücre takip yazılımı aracı kullanılarak tek hücreli takip ve soy yeniden yapılandırması. Tespit edilen çekirdekler, hücre yörüngelerini ve soy ağaçlarını yeniden oluşturmak için zaman noktaları arasında birbirine bağlanır; böylece hücre bölünmesi, göçü ve ekstrüzyon olaylarının nicelendirilmesini sağlar. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
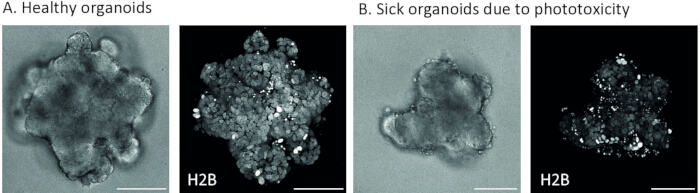
Şekil 2: Canlı konfokal görüntüleme sırasında sağlıklı ve fototoksik insan bağırsak organoidlerinin karşılaştırılması. (A) Sağlıklı bir insan bağırsak organoidinin temsil parlak alan ve floresan görüntüleri. Sağlıklı organoidler, çevredeki ortamda hücre kalıntısı olmadan net kistik veya tomurcuklanma morfolojisi gösterir. (B) Fototoksik hasarı gösteren insan bağırsak organoidinin temsil eden parlak alan ve floresan görüntüleri. Fototoksisite belirtileri arasında çevredeki ortamda hücre kalıntılarının birikimi, nükleer yoğuşma ve hücre bölünmesinin durması bulunur. H2B-mCherry floresans görüntüleri maksimum yoğunluk projeksiyonları olarak gösterilir. Ölçek çubukları, 100 μm. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
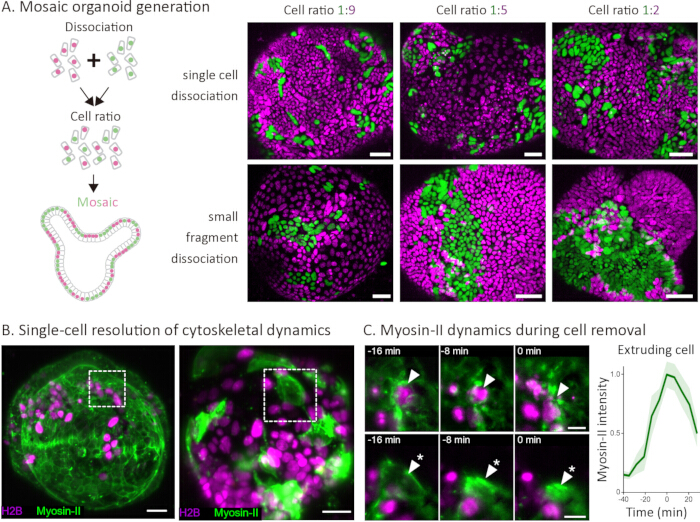
Şekil 3: Farenin bağırsak organoidlerinde simtozamun dinamiklerinin mozaik organoid üretimi ve tek hücresel çözünürlüğü. (A) Ayrıştırma, belirli oranlarda karıştırma ve yeniden toplama yoluyla mozaik organoid oluşumunun şeması. 1:9, 1:5 ve 1:2 hücre oranlarında oluşturulan mozaik organoidlerin temsil eden konfokal görüntüleri (H2B-mCherry, yeşil; H2B-iRFP, magenta) tek hücreli ayrışma (üst sıra) veya küçük parça ayrışması (alt satır) kullanılarak yapılır. Tek hücreli ayrışma tuz-karabiber karışımı bir deseni oluştururken, küçük parça ayrışması daha büyük klonal lekelere yol açar. Ölçek çubukları, 50 μm. (B) Yoğun (sol) veya seyrek (sağ) bir popülasyonun Myosin-II-mNeonGreen (yeşil) ifade ettiği mozaik organoidlerin konfokal görüntüleri; diğer popülasyon ise sadece H2B-iRFP (magenta) ifade eder. Kesik kutular (C)'de büyütülmüş bölgeleri gösterir. Ölçek çubukları, 20 μm. (C) Hücre ekstrüzyonunu 8 dakika aralıklarla gösteren zaman geçişli seriler, hücre çıkarılma anına göre hizalanmış (t = 0 dakika). Üst sıra (ok uçları): Myosin-II-mNeonGreen ifade eden komşularla çevrili etiketlenmemiş bir hücrenin ekstrüzyonu, komşuluk yanıtını ortaya çıkarır. Alt sıra (yıldız işaretleri): etiketlenmemiş komşularla çevrili bireysel Myosin-II-mNeonGreen-ekspresyon hücresinin ekstrüzyonu, kortikal miyozin dinamiklerinin ekstrüzion hücreye net bir şekilde atfedilmesini sağlar. Ölçek çubukları, 10 μm. Sağda: Ekstrüziye hücreler için zamanla normalize edilmiş Myosin-II-mNeonGreen floresans yoğunluğu, hücre çıkarılma anına (t = 0 dakika) hizalandı. Miyozin-II, ekstrüzyon öncesi dakikalarda kademeli olarak birikir, çıkarılma anında zirve noktasına ulaşır. Gölgeli alan standart sapmayı gösterir. Bu figürün daha büyük bir versiyonunu görmek için lütfen buraya tıklayın.
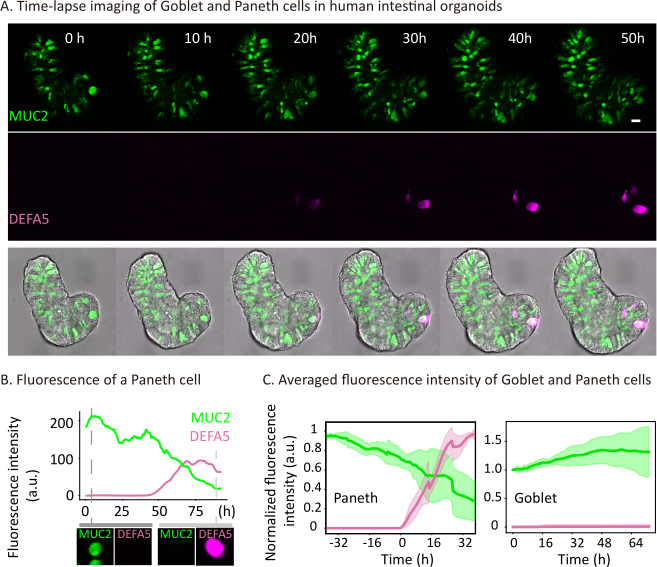
Şekil 4: MUC2-mNeonGreen ve DEFA5-dsRed kader muhabirleri kullanılarak insan bağırsak organoidlerinde sekretor hücre kader geçişlerinin gerçek zamanlı izlenmesi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
(A) Olgunlaşma ortamında kültürlenmiş ve olgunlaşmanın 7. gününden itibaren görüntülenen insan bağırsağı organoidinin temsil zaman geçişli konfokal görüntüleri. MUC2-mNeonGreen (yeşil) kadeh hücrelerini, DEFA5-dsRed (magenta) ise Paneth hücrelerini işaretler. Ölçek çubuğu, 20 μm. (B) Temsilli bir Paneth hücresi için MUC2-mNeonGreen (yeşil) ve DEFA5-dsRed (magenta) floresans yoğunluğunun zaman içinde tek hücreli nicel ölçümü; başlangıçta MUC2-mNeonGreen aktivasyonu, ardından kademeli sinyal azalması ve ardından DEFA5-dsRed başlangıcı. Floresans yoğunluğu rastgele birimlerle (a.u.) gösterilmiştir. (C) Kadeh hücreleri (n = 7 hücre) ve Paneth hücresi öncülleri (n = 8 hücre) için ortalama floresans yoğunluk eğrileri MUC2-mNeonGreen (yeşil) ve DEFA5-dsRed (magenta) sinyal dinamiklerini zaman içindegöstermektedir 6. Paneth hücre öncülleri için zaman, DEFA5-dsRed sinyalinin ilk ortaya çıkışıyla hizalanmıştır (t = 0 h). Goblet hücreleri zaman içinde tutarlı olarak yüksek MUC2-mNeonGreen yoğunluğunu korurken, Paneth hücresi öncülleri MUC2-mNeonGreen ile DEFA5-dsRed sinyalleri arasında karakteristik bir ters ilişki gösterir. Gölgeli alanlar standart sapmayı gösterir.
| Bileşen | Stok yoğunluğu | Son yoğunlaşma |
| Gelişmiş Dulbecco'nun Modifiye Eagle Medium/F12 (Gelişmiş DMEM/F12) | Baz ortam | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| N2 takviyesi | 100x | 1x |
| B27 takviyesi | 50x | 1x |
| N-asetilsistein | 500mM | 1mM |
| Penisilin/Streptomisin | 10000U/ml, 10000ug/ml | 100U/ml, 100U/ml |
| Rekombinant fare EGF | 50ng/ml | |
| Rekombinant morun Noggin | 100ng/ml | |
| Rekombinant insan R-spondin 1 | 500ng/ml |
Tablo 1: Farenin bağırsak organoidleri için büyüme ortamı.
| Bileşen | Stok yoğunluğu | Son yoğunlaşma |
| Gelişmiş Dulbecco'nun Modifiye Eagle Medium/F12 (Gelişmiş DMEM/F12) | Baz ortam | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27 takviyesi | 50x | 1x |
| Penisilin/Streptomisin | 10000U/ml, 10000ug/ml | 100U/ml, 100U/ml |
| Primocin | 50mg/ml | 100ug/ml |
| R-spondin koşullu ortam (U-Protein Ekspresi) | 2% | |
| Noggin koşullu ortam (U-Protein Ekspresi) | 2% | |
| N-asetilsistein | 500mM | 1mM |
| Nikotinamid | 1M | 10mM |
| İnsan rekombinant EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| SB202190 (p38 inhibitörü) | 30mM | 3uM |
| Prostaglandin E2 | 10mM | 1uM |
| Wnt vekili | 1000x |
Tablo 2: İnsan bağırsak organoidleri için genleşme ortamı.
| Bileşen | Stok yoğunluğu | Son yoğunlaşma |
| Gelişmiş Dulbecco'nun Modifiye Eagle Medium/F12 (Gelişmiş DMEM/F12) | Baz ortam | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27 takviyesi | 50x | 1x |
| Penisilin/Streptomisin | 10000U/ml, 10000ug/ml | 100U/ml, 100U/ml |
| Primocin | 50mg/ml | 100ug/ml |
| R-spondin koşullu ortam (U-Protein Ekspresi) | 2% | |
| Noggin koşullu ortam (U-Protein Ekspresi) | 2% | |
| N-asetilsistein | 500mM | 1mM |
| İnsan rekombinant EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Wnt vekili | 1000x | |
| CHIR99021 | 3mM | 3uM |
| Rekombinant İnsan IL-22 | 10 ug/ml | 2ng/ml |
Tablo 3: İnsan bağırsak organoidleri için desenleme ortamı.
| Bileşen | Stok yoğunluğu | Son yoğunlaşma |
| Gelişmiş Dulbecco'nun Modifiye Eagle Medium/F12 (Gelişmiş DMEM/F12) | Baz ortam | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27 takviyesi | 50x | 1x |
| Penisilin/Streptomisin | 10000U/ml, 10000U/ml | 100U/ml, 100U/ml |
| Primocin | 50mg/ml | 100ug/ml |
| R-spondin koşullu ortam (U-Protein Ekspresi) | 2% | |
| Noggin koşullu ortam (U-Protein Ekspresi) | 2% | |
| N-asetilsistein | 500mM | 1mM |
| İnsan rekombinant EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Wnt vekili | 30000x | |
| Rekombinant İnsan IL-22 | 10 ug/ml | 2ng/ml |
Tablo 4: İnsan bağırsak organoidleri için olgunlaşma ortamı.
Tartışma
Bu protokol, insan ve fare bağırsak organoidlerinde canlı hücre konfokal görüntüleme ve tek hücre takibi için adım adım bir iş akışı sunar; bu süreç iki tamamlayıcı deneysel sistem etrafında inşa edilir: yoğun bir epitelyumda bireysel hücre davranışını çözen mozaik organoidler ve gerçek zamanlı olarak sekretör hücre tipi geçişlerini izlemek için MUC2-mNeonGreen ve DEFA5-dsRed ifade eden fate reporter organoidler.
İmmünofluoresans veya tek hücreli RNA dizileme gibi sabit zaman noktası yöntemleriyle karşılaştırıldığında, canlı görüntüleme geçiş dinamiklerini yakalar, anlık görüntüler değil. CRE tabanlı soy takibi ile karşılaştırıldığında, bireysel kader kararlarını belirlemek için zamansal çözüm sağlar. Mozaik yaklaşım, aynı doku bağlamında içsel kontrollü karşılaştırmalar ekler ve organoid-organoid değişkenliği karıştırmaktan kaçınır.
Protokoldeki birkaç adım başarı için kritiktir. Tuz ve karabiber dağılımı olan bir mozaik için, organoidlerin tek hücrelere ayrışması ayrıntılı ama nazik olmalıdır: eksik ayrışma büyük klonal lekeler oluştururken, aşırı ayrışma canlılığı azaltır (Bölüm 4.3). BME'ye yeniden gömülmeden önce düz bir yüzeyde 24 saatlik toplama adımı, iki popülasyonun doğru şekilde karışması için gereklidir; bu sistemin çıkarılması kötü entegre mozaiklere yol açar (Bölüm 4.6–4.8). Görüntüleme sırasında fototoksisite yönetimi, dikkatli kalibrasyon gerektirir; muhafazakar lazer ayarlarıyla başlar ve yalnızca takip yazılımı aşırı yanlış negatif üretirse artırır (Bölüm 6.8).
Ana sınırlamalar, organoid sistemlerin ve canlı görüntülemenin doğasında bulunan kısıtlamalarla ilgilidir. Organoidler, hücre davranışını in vivo etkileyebilecek stromal, damar ve bağışıklık bileşenlerinden yoksundur. Konfokal mikroskopide görüntüleme derinliği örtü kaydırmasından yaklaşık 100 μm ile sınırlıdır; bu mesafeden sonra ışık saçılması sinyal kalitesini ve takip doğruluğunu düşürür. Çok foton ve ışık tabakası mikroskobi, ek enstrümantasyon ve protokol uyumu pahasına bu derinlik aralığını önemli ölçüde genişletebilir. Yarı otomatik takip yaklaşımı, manuel notasyondan önemli ölçüde daha verimli olsa da, özellikle yoğun dokularda önemli düzeltme süresi gerektirir (Bölüm 7.4).
Her iki strateji de kolayca genişletilebilir. Nükleer belirteçiyle birlikte ifade edilen raporlayıcı değiştirilerek, mekanik dinamikler için kortikal Myosin-II'den yapışma yeniden modellenmesi için birleşimsel E-kadherin'e, tq-Ca-FLITS ve ColBD-Twitch gibi kalsiyum biyosensörlerine veya hücresel NAD+/NADH redoks durumu için SoNar gibi metabolik biyosensörlere kadar tek hücre davranışının farklı yönleri incelenebilir; böylece aynı organoid içinde hücre kimliği, soy ve fizyolojik durum eşzamanlı olarak okunabilir9, 25,26,27. Karışım oranının ayarlanması analizi ayarlıyor: seyrek etiketlenmiş hücreler, zar sinyallerinin tek hücreli atatfisyonunu sağlarken, seyrek etiketlenmemiş hücreler komşu yanıtlarını ortaya koyar. Fate reporter stratejisi, CRISPR-HOT veya HDR tabanlı etiketlemeye uygun herhangi bir iç lokusa genişletilebilir. Her iki yaklaşımı aynı organoid içinde birleştirmek, soy bağlılığı ve tek hücre dinamiklerinin eşzamanlı izlenmesine olanak tanır.
Daha geniş anlamda, görüntüleme ve analiz hattı, diğer epitel dokularından türetilen organoidler, bunlar arasında mide, kolonik, hepatik ve pankreas modelleri de vardır. İndüklenmiş pluripotent kök hücre (iPSC) türevli organoidler, H2B tabanlı nükleer etiketleme ve hücre karıştırmasıyla mozaik üretimi doğrudan aktarılabilir olduğundan, umut verici bir uzantıdır ve bu boru hattı, hücre kaderi ve rekabetçi dinamiklerin hastaya özgü çalışmalarını mümkün kılabilir. Gastruloidler ve kök hücre köklü embriyoidler gibi sentetik embriyo modelleri de tek hücreli takibe uygundur; ancak daha karmaşık geometrileri ve daha yüksek nükleer yoğunlukları yarı otomatik organoid hücre takip yazılımı aracı sinir ağı modelinin yeniden eğitilmesini ve görüntüleme parametrelerinin uyarlanmasını gerektirebilir. Beyin organoidleri, büyük boyutları ve optik yoğunlukları nedeniyle konfokal görüntüleme derinliğini sınırlayan ek zorluklar sunar. Ayrıca, beyin organoidleri anlamlı görüntüleme deneyleri yapılabilmek için haftalar ila aylar süren farklılaşma gerektirir; bu da bağırsak organoidlerine kıyasla deneysel zaman çizelgelerini önemli ölçüde artırır. Bazı beyin organoid protokolleri ayrıca BME gömülü yerine süspansiyon kültürüne dayanır; bu da burada açıklanan örnek hazırlama yaklaşımıyla tutarlı değildir ve görüntülemeden önce matrisle gömülü veya yüzeye bağlı formatlara uyarlanmayı gerektirir. Fototoksisiteyi azaltan ve daha yüksek görüntüleme derinliği sunan ışık tabakası mikroskopisi, bu sistemler için daha uygun olabilir13. Bu uzantılar, burada tanımlanan epitel organoidlerin ötesinde çeşitli 3B model sistemleri üzerindeki boru hattının geniş potansiyelini ortaya koyuyor.
Açıklamalar
H.C., organoid teknolojisiyle ilgili patentler konusunda mucittir. Diğer tüm yazarlar rekabet eden çıkarlar belirtmemektedir.
Teşekkürler
Bu araştırma, Hollanda Hükümeti Eğitim, Kültür ve Bilim Bakanlığı tarafından NWO Yerçekimi projesi Malzeme Odanlı Yenilenme (024.003.013 ZWK MDR) aracılığıyla ve Avrupa Araştırma Konseyi tarafından ERC İleri Düzey Hibesi GutHormones (nr 101020405) aracılığıyla finanse edilmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | sıcaklık ve CO2 için iklim kontrolü ile |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | açık kaynak | açık kaynak https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | uzak kırmızı canlı hücre çekirdek boyası | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | açık kaynak | açık kaynak https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | ev yapımı | plazmid oluşturma protokolü DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | ev yapımı | plazmid oluşturma protokolü DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | ev yapımı | plazmid oluşturma protokolü DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | uzak kırmızı canlı hücre DNA boyası | ||
| SB202190 (p38 inhibitörü) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | özel sipariş | |
| Wnt3A conditioned medium | ev yapımı | Wnt3A koşullandırılmış ortam üretimi burada bulunabilir: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında