Bu çalışma, Bushen-Jianpi-Qingchang formülü ve alt formüllerinin sıçan koliti üzerindeki terapötik etkilerini araştırmakta ve multi-omik analizler aracılığıyla, bağırsak mikrobiyotası-safra asidi metabolik aksını hedefleyen düzenleyici mekanizmalarını ortaya koymaktadır.
Araştırma makalesi
Bushen Jianpi Qingchang Formülü, Safra Asidi Metabolizmasını ve Bağırsak Mikrobiyotasını Düzenleyerek Sıçanlarda Koliti İyileştirir
Bu makalede
Özet
Özet
Geleneksel Çin tıbbı (TCM), kanıtlanmış etkinliği ve uygun güvenlik profili nedeniyle ülseratif kolitin (UC) yönetiminde yaygın olarak kullanılmaktadır. Kronik refrakter UC'nin temel patogenezi, bağırsak nem-ısı birikimine eşlik eden dalak ve böbrek eksikliğini içerir ve Bushen-Jianpi-Qingchang formülü (BJQF), bu durum için klinik olarak doğrulanmış bir bileşik reçetedir. Bu çalışma, BJQF'nin ve onun üç ayrıştırılmış alt formülünün (Bushen formülü, BSF; Jianpi formülü, JPF; Qingchang formülü, QCF), sıçanlarda dekstran sülfat sodyum (DSS) ile indüklenen kolit üzerindeki terapötik etkilerini araştırmayı ve dışkı safra asidi (BA) profilleri ile bağırsak mikrobiyota toplulukları üzerindeki düzenleyici etkilerini karakterize etmeyi amaçlamıştır. DSS ile indüklenen UC sıçanlarında dışkı bakteriyel kompozisyonu ve BA konsantrasyonları, 16S rRNA geni dizileme ve sıvı kromatografi-tandem kütle spektrometrisi (LC-MS/MS) aracılığıyla nicelendirilmiş ve bağırsak mikrobiyota ile BA metabolizması arasındaki potansiyel ilişki analiz edilmiştir. BJQF, UC modelinde kolonik inflamasyonu ve ülserasyonu önemli ölçüde iyileştirmiştir. Kolitli sıçanlar ile sağlıklı kontroller arasında bakteriyel çeşitlilik ve kompozisyonda belirgin değişiklikler saptanmıştır. Diferansiyel bakteriler ile BA'lar arasındaki ilişki, anahtar bir metabolik düğüm olarak 23-deoksikolik asit (23-DCA) üzerinde yoğunlaşmıştır. Özellikle, taurolitokolik asit-3-sülfat (TLCA-3S) ve litokolik asit-3-sülfat (LCA-3S), potansiyel etkinlik biyobelirteçleri olarak hizmet edebilir. JPF alt formülü, tam BJQF'ye en benzer etkinliği sergilemiştir. BJQF ve ayrıştırılmış formüllerinin uygulanması, UC sıçanlarında histopatolojik hasarı, inflamasyonu, bağırsak mikrobiyal disbiozunu ve BA metabolik bozukluğunu etkili bir şekilde iyileştirerek, TCM bileşik tedavisi için mekanistik bir temel sağlamaktadır.
Giriş
İnflamatuar bağırsak hastalığının (IBH) ana formlarından biri olan ülseratif kolit (UK), kolorektal mukoza ile sınırlı, kronik ve sürekli non-spesifik inflamasyon ile karakterizedir. UK hastaları; yaşam kalitesini ciddi şekilde bozan diyare, abdominal ağrı, istemsiz kilo kaybı ve kanlı veya pürülan dışkılama gibi klinik semptomlar sergilerler. UK'nin patogenezi çevresel, genetik, mikrobiyal ve immün faktörleri içerir. UK tipik olarak bağırsak mikrobiyota dengesizliğinin ardından gelişir ve bu disbiyoz UK progresyonunu belirgin şekilde hızlandırabilir1. Biriken kanıtlar, bağırsak mikrobiyota-safra asidi (SA) metabolik eksenini UK patogenezinde temel bir düzenleyici modül olarak tanımlamıştır. Safra asidi dismetabolizması, IBH'de intestinal mukoza hasarının iyi bilinen bir özelliğidir. Sekonder SA'lar, bu biyotransformasyon için 7α-dehidroksilaz gibi temel enzimleri eksprese eden bağırsak mikrobiyotası tarafından, konakçı kaynaklı primer SA'lardan özel olarak biyosentezlenir. Bu nedenle, fekal safra asidi havuzu, TCM tedavisi tarafından indüklenen mikrobiyom yeniden şekillenmesini yansıtan ideal bir fonksiyonel okuma çıktısı görevi görür.
Bu sekonder safra asitleri (SA), intestinal immün homeostazı, mukozal bariyer bütünlüğünü ve epitel hücre sağkalımını korumak için kritik sinyal molekülleri olarak görev yaparlar2. Mikrobiyal disbiyozun tetiklediği sekonder SA eksikliği ve bozulan SA sinyalleri dahil olmak üzere bu eksendeki anomaliler, intestinal pro-inflamatuar yanıtları ve bariyer disfonksiyonunu doğrudan tetikleyerek, bu ekseni ÜK müdahalesi için gelecek vadeden bir terapötik hedef haline getirir. Bağırsak mikrobiyotası, ÜK gelişiminde kritik bir rol oynar ve konakçıyı, fermentatif reaksiyonlarla üretilen safra asitleri gibi metabolik ürünler aracılığıyla etkiler. Bağırsak mikrobiyotasındaki ve SA metabolizmasındaki anormal değişimler ÜK ile yakından ilişkilidir3. Bağırsak mikrobiyotası sekonder SA üretimini aracı kıldığı için, mikrobiyal kompozisyondaki ve bolluktaki değişiklikler SA metabolizmasını bozabilir ve IBD gelişimine katkıda bulunabilir4.
Geleneksel Çin Tıbbı (TCM), anti-inflamatuar veya immünosupresif ajanlara alternatif veya destek olarak uzun süreli tedavideki etkinliği ve güvenilirliği nedeniyle Ülseratif Kolit (ÜK) yönetiminde yaygın olarak benimsenmiştir5. Dalak ve böbrekleri ısıtmak ve tonifiye etmek, bağırsağı temizlemek ve nemi dağıtmak, ÜK için temel terapötik prensiplerdir6. TCM teorisine göre, kronikleşmiş ÜK'nin temel patogenezi, dalak ve böbrek yetmezliği (Fu-Zheng, hayati qi güçlendirmesi) ile bağırsak nem-ısı birikiminin (Qu-Xie, patojenik faktör eliminasyonu) birleşimidir ve bu iki stratejinin sinerjik uygulaması etkili ÜK tedavisi için esastır.
Önceki deneysel çalışmalar, BJQF'nin iki temel alt formülü olan JPF ve QCF'nin, UC'ye karşı terapötik etkiler gösterdiğini doğrulamıştır. JPF, NF-κB/HIF-1α sinyal yolu aracılığıyla mukozal inflamasyonu ve intestinal epitel bariyer disfonksiyonunu iyileştirirken7, QCF bağırsak mikrobiyota-metabolizma homeostazını geri kazandırır, intestinal epitel bariyerini korur ve NLRP3/IL-1β yolunu düzenler8. Fu-Zheng ve Qu-Xie fonksiyonel modüllerinin bağırsak mikrobiyota-BA aksına olan spesifik biyolojik katkılarını analiz etmek için bu çalışma, tam BJQF formülünü ve üç ayrıştırılmış alt formülü içerecek şekilde tasarlanmıştır: BSF (Bushen formülü, dalak-böbrek tonikleyici, saf Fu-Zheng), JPF (Jianpi formülü, dalak canlandırıcı, temel Fu-Zheng) ve QCF (Qingchang formülü, intestinal nem-ısı temizleyici, saf Qu-Xie). Bu deneysel tasarım, UC tedavisinde her bir fonksiyonel modülün sinerjik ve bağımsız etkilerinin çözümlenmesine olanak tanır ki bu durum, TCM bileşik reçetelerinin kanıta dayalı tedaviye dönüştürülmesi açısından kritik öneme sahiptir.
Çalışma hipotezi, BJQF'nin bağırsak mikrobiyal kompozisyonunu yeniden şekillendirerek ve safra asidi metabolizmasını normalize ederek DSS kaynaklı koliti iyileştirdiği ve Jianpi modülünün, bağırsak mikrobiyota-SA ekseni üzerindeki düzenleyici etkileri yönlendiren temel fonksiyonel bileşen olarak görev yaptığıdır. Bu çalışma, BJQF'nin "bileşikten modüle" mekanizmasını sistematik olarak analiz etmek için tasarlanmıştır. Tam formülü ve buna karşılık gelen hedeflenmiş fizyolojik alt modülleri değerlendirerek, çalışma bu TCM bileşiğinin biyolojik sinerjisini çözmeyi ve bağırsak mikrobiyota-safra asidi metabolik eksenini düzenleyerek IBD tedavisi için modern bir farmakolojik temel sağlamayı amaçlamaktadır. Burada, tam BJQF'nin ve ayrıştırılmış üç fonksiyonel formülünün DSS kaynaklı UC'ye karşı terapötik etkinliği sistematik olarak karşılaştırılmıştır. Bağırsak mikrobiyota-safra asidi metabolik ekseninin UC patogenezindeki merkezi rolü göz önüne alındığında, bu çalışma BJQF'nin bileşikten modüle sinerjik mekanizmasını analiz etmekte, Bushen, Jianpi ve Qingchang modüllerinin spesifik düzenleyici katkılarını açıklamakta ve her bir modülün bağırsak mikrobiyal kompozisyonu ve fekal safra asidi profilleri üzerindeki yeniden şekillendirme etkilerini karakterize etmektedir. Temel hedefler, BJQF'nin UC'yi hafifletmedeki modern biyolojik temelini ortaya çıkarmak, TCM müdahalesi için temel mikrobiyal-metabolik hedefleri belirlemek ve IBD'de bileşik TCM reçetelerinin rasyonel uygulaması ve translasyonel araştırmaları için mekanistik bir referans sunmaktır.
Protokol
Çalışma için 200 ± 20 g ağırlığında kırk dört sağlıklı erkek Sprague-Dawley sıçan temin edildi. Tüm hayvanlar, standart pelet diyete ve suya serbest erişimin olduğu spesifik patojen içermeyen koşullarda barındırıldı ve deneyden önce 1 hafta boyunca alıştırma sürecine tabi tutuldu. Tüm hayvan refahı ve deneysel prosedürler, Çin Bilim ve Teknoloji Bakanlığı tarafından yayınlanan Laboratuvar Hayvanlarının Bakımı ve Kullanımı Kılavuzu'na uygun olarak gerçekleştirildi. Çalışma, Nanjing Çin Tıp Üniversitesi Hayvan Etik Kurulu tarafından 2023DW-029-01 onay numarası ile onaylanmıştır. Hayvan kaynağı ve bakım malzemelerinin tüm ayrıntıları Malzemeler Tablosunda verilmiştir.
Geleneksel Çin Tıbbı (TCM) formül hazırlığı
Tam Bushen-Jianpi-Qingchang formülü (BJQF), önceden belirlenmiş dozlarda dokuz bitkisel bileşenle hazırlanmıştır: 15 g Astragali Radix, 10 g kavrulmuş Atractylodis Macrocephalae Rhizoma, 10 g Scutellariae Radix, 4 g Coptidis Rhizoma, 10 g Sanguisorbae Radix, 6 g Aucklandiae Radix, 5 g Glycyrrhizae Radix, 15 g Psoraleae Fructus ve 15 g Alpiniae Oxyphyllae Fructus. Tüm ham bitkisel materyaller normal salyende 1 saat boyunca bekletilmiş, ardından 1500 mL nihai hacim elde edilene kadar 1 saat boyunca kaynatılmıştır (dekoksiyon). Aynı kaynatma protokolü kullanılarak üç adet alt formül hazırlanmıştır. Bushen formülü (BSF), 15 g Psoraleae Fructus ve 15 g Alpiniae Oxyphyllae Fructus içererek 500 mL nihai hacme kadar kaynatılmıştır. Jianpi formülü (JPF), 15 g Astragali Radix, 10 g kavrulmuş Atractylodis Macrocephalae Rhizoma ve 5 g Glycyrrhizae Radix bileşenlerinden oluşmuş ve nihai kaynatma hacmi 500 mL olarak belirlenmiştir. Qingchang formülü (QCF), 10 g Scutellariae Radix, 4 g Coptidis Rhizoma, 10 g Sanguisorbae Radix ve 6 g Aucklandiae Radix içererek yine 500 mL nihai hacme ayarlanmıştır. Tüm bitkisel materyallere ait eksiksiz üretici spesifikasyonları ve parti numaraları Materyal Tablosunda verilmiştir. Ana metin boyunca tutarlı bir şekilde genel bitki terminolojisi kullanılmış; üreticiye özgü detaylar yalnızca Materyal Tablosu ile sınırlandırılmıştır.
Kolit indüksiyonu ve deneysel gruplandırma
Sıçanlar rastgele altı deneysel gruba ayrıldı: Kontrol grubu (n = 6): normal içme suyu + intragastrik normal salin. UC model grubu (n = 6): %3,5 (ağırlık/hacim) DSS içme suyu + intragastrik normal salin. BJQF tedavi grubu (n = 8): %3,5 DSS içme suyu + intragastrik BJQF (0,6 g/kg vücut ağırlığı). BSF tedavi grubu (n = 8): %3,5 DSS içme suyu + intragastrik BSF (0,6 g/kg vücut ağırlığı). JPF tedavi grubu (n = 8): %3,5 DSS içme suyu + intragastrik JPF (0,6 g/kg vücut ağırlığı). QCF tedavi grubu (n = 8): %3,5 DSS içme suyu + intragastrik QCF (0,6 g/kg vücut ağırlığı).
Deneysel kolit, içme suyuna eklenen %3,5 DSS ile 10 ardışık gün boyunca indüklenmiştir; kontrol grubu DSS içermeyen distile su almıştır. Her bir TCM formülünün dozu (0,6 g/kg), vücut yüzey alanı normalizasyon yöntemi (Meeh-Rubner formülü) kullanılarak klinik olarak etkili yetişkin dozundan sıçan eşdeğeri doza dönüştürülmüştür. Formül karşılaştırmasına odaklanan bir keşif aşaması çalışması olarak, tek bir klinik eşdeğer doz benimsenmiştir. 1. günden itibaren, her bir TCM formülü günde bir kez intragastrik olarak uygulanmıştır. Kontrol ve model grupları aynı hacimde normal salin (10 mL/kg) almıştır. 11. günde, sıçanlar servikal dislokasyon yoluyla sakrifiye edilmiştir. Analiz için serum, fekal örnekler ve kolon dokuları toplanmıştır. Vücut ağırlığı günlük olarak ölçülmüştür. Tüm gruplar başlangıçta n = 8 olarak tasarlanmıştır. DSS indüksiyonu sırasında, kontrol ve model gruplarındaki 2'şer sıçan şiddetli kolit nedeniyle ölmüş ve bu durum söz konusu iki grup için final n = 6 ile sonuçlanmıştır. Post-hoc güç analizi, nihai örneklem boyutunun tüm temel çıktılar (histolojik skor, temel sitokinler, vücut ağırlığı) için ≥ 0,8 istatistiksel güce ulaştığını ve standart istatistiksel gereklilikleri karşıladığını doğrulamıştır.
İnflamatuar sitokin konsantrasyonlarının ölçümü
IL-1β, IL-10 ve TNF-α serum seviyeleri, üretici protokolleri kesin olarak takip edilerek ticari ELISA kitleri kullanılarak nicelendirildi. Optik yoğunluk değerleri otomatik bir mikroplaka okuyucu ile okundu. İstatistiksel analiz: gruplar arasındaki genel farklılıklar için tek yönlü ANOVA uygulandı ve ardından omik veri analizi ile uyumlu olarak, post-hoc ikili karşılaştırmalar için Benjamini-Hochberg FDR düzeltmesi yapıldı.
Histopatolojik değerlendirme
Kolon doku örnekleri %10 formalin ile fikse edildi, susuzlaştırıldı, parafine gömüldü, kesite alındı ve hematoksilin-eosin (HE) ile boyandı. Histolojik skorlama, deneysel kolit için valide edilmiş yarı kantitatif bir rubrik olan modifiye Cooper kolit skorlama sistemi kullanılarak gerçekleştirildi9. Skorlama dört boyutu kapsamaktadır: inflamatuar infiltrasyon, kript yapısal hasarı, mukozal ödem ve ülser yaygınlığı (toplam skor 0–12). Körleme beyanı: Tüm lamlar, skorlama öncesinde sayısal kodlarla anonim hale getirildi. Grup atamalarından habersiz iki bağımsız patolog, her lamı bağımsız olarak skorladı. Nihai skor, iki skorun ortalaması olarak belirlendi; 2 puan veya üzerindeki farklılıklar kıdemli üçüncü bir patolog tarafından çözümlendi. Diğer fenotipik verilerle tutarlı olarak, ikili karşılaştırmalar için Benjamini-Hochberg FDR düzeltmeli tek yönlü ANOVA uygulandı.
Numune toplama ve DNA ekstraksiyonu
Taze sıçan dışkı numuneleri 1 mL steril santrifüj tüplerine toplandı, derhal −80 °C'de donduruldu ve kuru buz üzerinde taşındı. Dışkıdaki bakteriyel genomik DNA, üretici talimatları izlenerek DNA Isolation Kit kullanılarak 250 mg dışkıdan ekstrakte edildi. DNA konsantrasyonu bir spektrofotometre aracılığıyla belirlendi ve bütünlüğü %0,8'lik agaroz jel elektroforezi ile doğrulandı. Ekstraksiyon ve miktar belirleme sırasında negatif bir tampon kontrolü kullanıldı. Ekstraktlar, kullanım öncesinde -20 °C'de saklandı.
16S rRNA geni sekanslaması ve biyoinformatik analizi
PCR amplifikasyonu ile 16S rRNA geninin V3–V4 hipervariable bölgeleri (338F–806R) hedeflendi. PCR ürünleri saflaştırıldı ve Illumina MiSeq platformunda 2 × 300-bp paired-end sekanslama ile dizilendi. Kalite filtrelemesinin ardından, örnek başına ortalama 68,450 ± 28,297 yüksek kaliteli temiz okuma elde edildi (maksimum 158,361, minimum 28,294). Diziler %97 benzerlikte OTU'lar şeklinde kümelendi. Seyreltme eğrileri, zenginlik indeksleri ve çeşitlilik indeksleri hesaplandı. Taksonomik anotasyon RDP Classifier kullanılarak gerçekleştirildi. Topluluk benzerliğini değerlendirmek için R programında UniFrac mesafelerine dayalı PCoA ve hiyerarşik kümeleme yapıldı. Farklı bolluğa sahip taksonları belirlemek için Galaxy platformunda LEfSe analizi uygulandı (eşikler: LDA > 3, Kruskal-Wallis p < 0.05, post-hoc Wilcoxon p < 0.05). Mikrobiyal bollukların çoklu karşılaştırmaları için Benjamini-Hochberg FDR düzeltmesi uygulandı; p(FDR) < 0.05 anlamlı kabul edildi.
Fekal safra asitlerinin LC-MS/MS analizi
20 mg'lık fekal örnek 200 µL metanol ile homojenize edildi. Santrifüjasyonun ardından süpernatan konsantre edildi, 100 µL %50 sulu metanol ile yeniden çözündürüldü ve LC-MS/MS ile analiz edildi. Deteksiyon sistemi, bir Shimadzu UPLC sistemi ve bir Applied Biosystems 6500 QTRAP MS/MS sistemi içeriyordu. Kalitatif ve kantitatif analizler, safra asidi standart kalibrasyon eğrileri kullanılarak gerçekleştirildi. Metabolik profilin ayrımını değerlendirmek için PCA kullanıldı. Diferansiyel safra asitleri VIP ≥ 1 ve kat değişimi (fold change) ≥ 2 veya ≤ 0.5 olarak tanımlandı. Diferansiyel BA dağılımlarını görselleştirmek için keman grafikleri (violin plots) kullanıldı. Çoklu karşılaştırmalar için, mikrobiyal veri analiziyle uyumlu olarak Benjamini-Hochberg FDR düzeltmesi uygulandı.
İstatistiksel analiz
Spearman korelasyonu, R'daki cor fonksiyonu kullanılarak hesaplanmıştır. Korelasyon anlamlılığı, WGCNA R paketindeki corPvalueStudent fonksiyonu ile test edilmiştir. Fenotipik veriler ortalama ± standart sapma (Ortalama ± SD) olarak ifade edilmiştir. Tüm çoklu grup karşılaştırmaları (fenotipik, mikrobiyal, metabolik) için, post-hoc testlerde Benjamini-Hochberg FDR düzeltmeli tek yönlü ANOVA uygulanmıştır. Düzeltilmiş p < 0.05 istatistiksel olarak anlamlı kabul edilmiştir. Tüm analizler GraphPad Prism 7.00 ve R 4.2.0 kullanılarak gerçekleştirilmiştir. Post-hoc örneklem büyüklüğü güç hesaplaması G*Power 3.1 kullanılarak yapılmıştır.
Sonuçlar
TCM formülleri, DSS ile indüklenen kolitte inflamasyonu ve kolon hasarını hafifletir
TCM formüllerinin koruyucu etkinliği ilk olarak vücut ağırlığı değişimleri ile değerlendirildi. Kontrol grubuyla karşılaştırıldığında, UC model grubu sürekli bir ağırlık kaybı gösterdi. BJQF, BSF, JPF ve QCF'nin tamamı, DSS ile indüklenen ağırlık kaybını anlamlı şekilde azalttı (Şekil 1A). HE boyaması, kontrol grubunda sağlam kolon mukozası ve inflamasyon olmadığını ortaya koydu. Buna karşılık, model grubu kolon dokusunda şiddetli epitelyal distorsiyon, kript yıkımı ve mukoza ile submukozada yaygın inflamatuar hücre infiltrasyonu görüldü. Tüm TCM tedavileri doku iyileşmesini destekledi ve inflamasyonu azalttı; BJQF en belirgin iyileşmeyi gösterdi (Şekil 1B–C). Kantitatif histolojik skorlama, TCM'nin histopatolojik hasarı anlamlı düzeyde hafiflettiğini doğruladı (p < 0.05).
BJQF, BSF, JPF ve QCF'nin tamamı, serum IL-1β (Şekil 1D) ve TNF-α (Şekil 1F) seviyelerini farklı derecelerde düşürmüştür. Tedavi gruplarındaki IL-10 seviyeleri kontrol grubu seviyelerine ulaşmamış, ancak model grubundan anlamlı derecede daha yüksek çıkmıştır (Şekil 1E). Bu sonuçlar, TCM formüllerinin DSS kaynaklı intestinal inflamasyonu inhibe ettiğini göstermektedir.
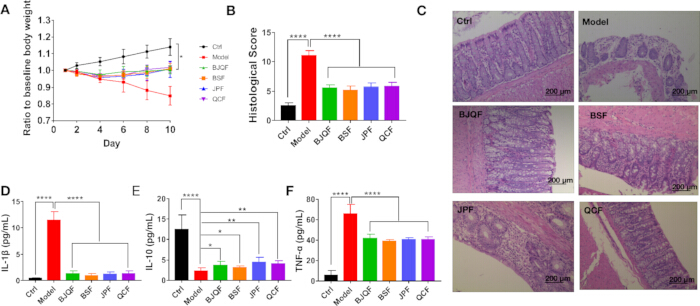
Şekil 1: BJQF ve ayrıştırılmış alt formüllerinin sıçanlarda DSS ile indüklenen kolit üzerindeki terapötik etkileri. (A) 10 günlük deney süresince her gruptaki vücut ağırlığının başlangıç değerine oranındaki dinamik değişimler; (B) Tüm deney gruplarının kolon dokularındaki kantitatif histolojik skorlar; (C) Her gruptan alınan temsili hematoksilin-eozin (HE) boyalı kolon dokusu kesitleri (ölçek çubuğu = 200 µm); (D–F) Her gruptaki inflamatuar sitokinlerin serum konsantrasyonları: (D) IL-1β, (E) IL-10, (F) TNF-α. Veriler ortalama ± SD olarak ifade edilmiştir. *p < 0.05, **p < 0.01, ****p < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
TCM tedavisi, UC farelerinde bağırsak mikrobiyal topluluk yapısını yeniden düzenler
Kalite filtrelemesinin ardından, örnek başına ortalama 68.450 ± 28.297 yüksek kaliteli temiz okuma elde edilmiştir. TCM tedavisi, bakteriyel α çeşitliliğini değiştirmiştir (Chao1 indeksi, Şekil 2A). BJQF, UC farelerindeki artmış α çeşitliliğini anlamlı şekilde azaltmıştır (p(FDR) < 0.05). Alt formüller arasında JPF çeşitliliği anlamlı şekilde azaltırken (p(FDR) < 0.05), BSF ve QCF'nin anlamlı bir etkisi gözlemlenmemiştir. β çeşitliliği için UniFrac mesafelerinin ağırlıklandırılmamış PCoA analizi, gruplar arasında net bir ayrım göstermiş ve bu durum TCM'nin genel mikrobiyal kompozisyonu yeniden şekillendirdiğini göstermiştir (Şekil 2B). Hiyerarşik kümeleme, model ve tedavi grupları arasında belirgin bir kümelenme olduğunu daha da kanıtlamıştır (Şekil 2C).
Toplamda 13 şube, 22 sınıf, 36 takım, 65 familya ve 158 cins tespit edildi. Şube düzeyinde Firmicutes, Bacteroidetes, Actinobacteria, Verrucomicrobia ve Proteobacteria baskındı (>%99 toplam bolluk, Şekil 2D). Kontrol grubunda Firmicutes baskındı (%86,98), UC grubunda ise anlamlı düzeyde azalmıştı (p(YDP) < 0,05) ve TCM ile geri kazanılmıştır (p(Yalancı Keşif Oranı) < 0,05), BJQF ise en güçlü etkiyi göstermiştir. Bacteroidetes ve Proteobacteria miktarları UC'de anlamlı düzeyde artmış ve tüm Geleneksel Çin Tıbbı (TCM) formülleriyle tersine çevrilmiştir. Cins düzeyinde (bolluk >1%, Şekil 2E), kontrol grubunda Lactobacillus baskındı (%59,77), UC'de ise belirgin şekilde azalmıştı (%3,57, p(YDP) < 0,05), ve TCM ile geri döndürülmüştür (p(YDK) < 0,05). BJQF ve JPF, Lactobacillus restorasyonu üzerinde daha güçlü etkiler göstermiştir. UC ayrıca Bacteroides, Ruminococcus_2, Bifidobacterium ve Blautia'yı artırmış; Enterorhabdus ve Corynebacterium_1'i ise azaltmıştır; bunların çoğu TCM ile geri döndürülmüştür. Genel olarak, tüm formüller UC ile ilişkili mikrobiyal disbiozu iyileştirmiş, BJQF ve JPF ise en belirgin etkileri göstermiştir.
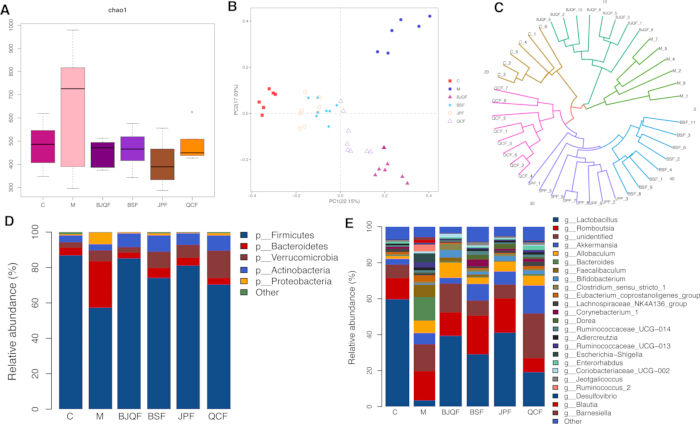
Şekil 2: Gruplardaki bağırsak mikrobiyota kompozisyonu. (A) Chao 1 kullanılarak değerlendirilen bakteriyel α çeşitlilik indeksi (p(FDR) < 0,05 Model'e karşı); (B) Farklı gruplardaki OTU kompozisyonu ve bolluklarına dayalı UniFrac mesafelerinin PCoA analizi; (C) Mesafe matrisine dayalı hiyerarşik kümeleme analizi; (D) Filum düzeyindeki bağıl bolluk (p(FDR) < 0,05 Model'e karşı); ve (E) Cins düzeyindeki bağıl bolluk (p(FDR) < 0,05 Model'e karşı). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
LEfSe, UC ile ilişkili ve TCM ile ilişkili farklı taksonları belirler
Gruplar arasında farklı şekilde zenginleşmiş taksonları belirlemek için LEfSe analizi gerçekleştirilmiştir (LDA > 3, p < 0.05, Şekil 3). UC ile zenginleşmiş taksonlar, ağırlıklı olarak Bacteroidetes ve Firmicutes filumlarından gelen Bacteroidaceae, Bacteroides, Clostridiales, Clostridia, Bacteroidia, Bacteroidales, Bacteroidetes, Faecalibaculum ve Ruminococcaceae taksonlarını içermiştir. TCM tedavisi sonrası, BJQF ile zenginleşmiş taksonların çoğu Firmicutes'e aitken, sadece Actinobacteria'den Bifidobacteriaceae, Bifidobacteriales ve Bifidobacterium görülmüştür. BSF ile zenginleşmiş taksonlar da ağırlıklı olarak Firmicutes idi. Turicibacter ve Dorea gibi JPF ile zenginleşmiş taksonlar Firmicutes'e aittir. QCF, Verrucomicrobia (Akkermansia dahil) üzerinde en güçlü zenginleşmeyi göstermiş ve bu filumun QCF müdahalesine karşı yüksek hassasiyeti olduğunu ortaya koymuştur. Genel olarak, BJQF, BSF ve JPF'ye en duyarlı filum Firmicutes olmuştur.
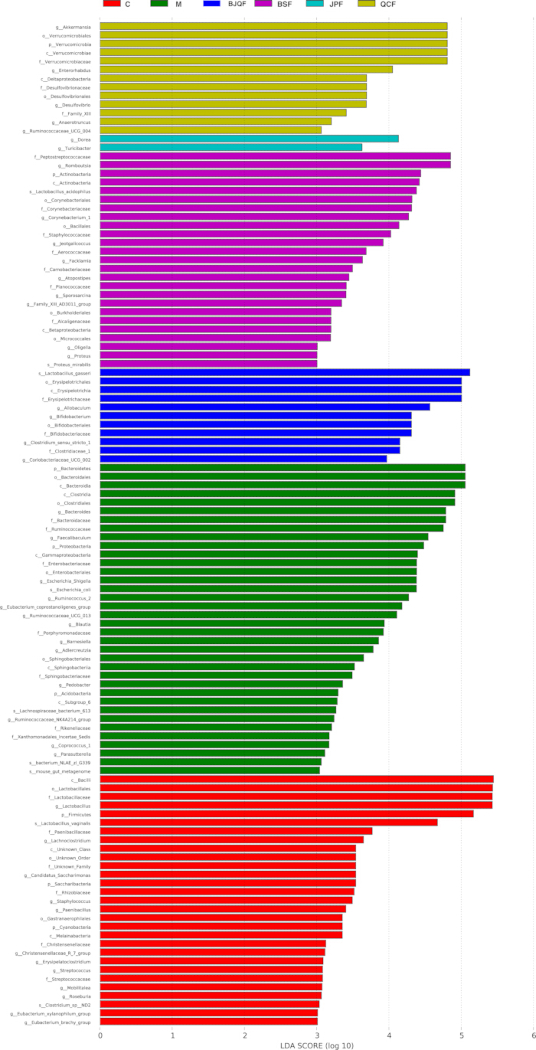
Şekil 3: LEfSe, farklı gruplardaki en belirgin farklılık gösteren OTU'ları belirledi. Sınıflar arasında (Kruskal–Wallis testi) ve alt sınıflar arasında (Wilcoxon testi) LDA skorlarında anlamlı farklılıklar (p < 0.05) tespit edildi. Diferansiyel taksonlar, > 3 LDA eşik skoru ve 0.05 istatistiksel anlamlılık seviyesine göre belirlendi. (p: phylum c: class o: order f: family g: genus). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
TCM müdahalesi UC farelerinde fekal safra asidi profillerini normalize eder
IBD'deki BA malabsorpsiyonu göz önüne alındığında, yazarlar fekal BA'ları nicelendirmek için LC-MS/MS kullandılar. PCA, kontrol ve model grupları arasında belirgin bir ayrım gösterirken, tüm tedavi grupları kontrollere daha yakın kümelendi ve bu durum BA metabolizmasının kısmen normalleştiğini gösterdi (Şekil 4A). Model grubunda en çok değişen BA'lar, yükselmiş LCA-3S ve azalmış GDCA idi (Şekil 4B). Tedavi sonrası en çok yukarı regüle olan BA'lar ILCA (BJQF), GCDCA (BSF), DLCA (JPF) ve GCDCA (QCF); en çok aşağı regüle olan BA'lar ise TLCA-3S (BJQF), LCA-3S (BSF), LCA-3S (JPF) ve TLCA-3S (QCF) idi (Şekil 4C–F). Keman grafikleri, gruplar genelindeki yaygın diferansiyel BA'ları görselleştirdi (Şekil 5). Özellikle, tüm TCM formülleri 23-DCA, 3-oxo-DCA ve DLCA'yı artırırken; HCA, LCA-3S, TCA ve TLCA-3S'yi azalttı.
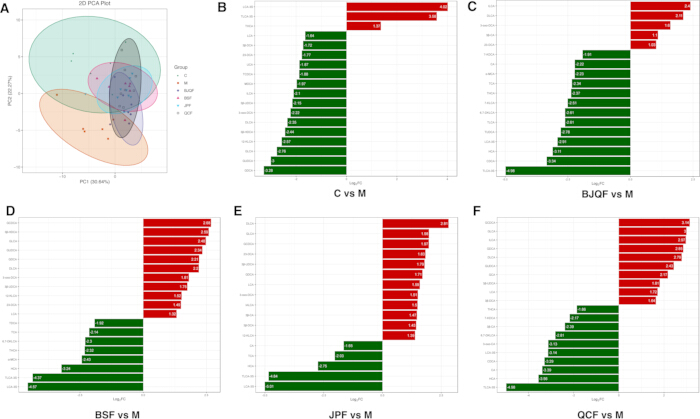
Şekil 4: TCM formülleri, UC modelinde DSS ile indüklenen safra asidi bozukluğunu düzenlemiştir. (A) Kontrol, Model, BJQF, BSF, JPF ve QCF gruplarının safra asidi PCA grafiği. (B) Model ile Kontrol arasındaki kat değişimin sütun diyagramı. (C) BJQF ile Model arasındaki kat değişimin sütun diyagramı. (D) BSF ile Model arasındaki kat değişimin sütun diyagramı. (E) JPF ile Model arasındaki kat değişimin sütun diyagramı ve (F) QCF ile Model arasındaki kat değişimin sütun diyagramı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
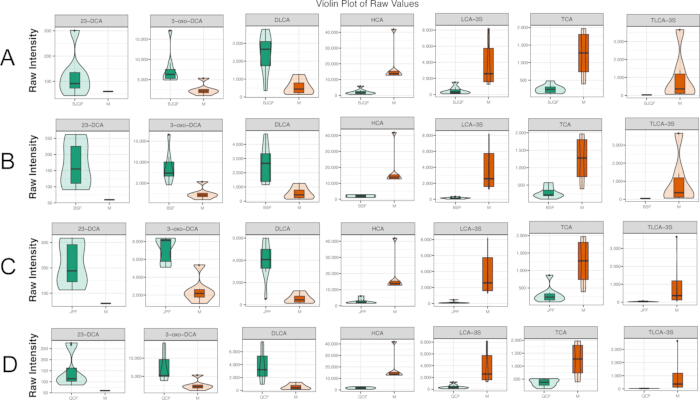
Şekil 5: Her bir karşılaştırma grubundaki diferansiyel BA'ların keman grafiği (violin plot). (A) Model ile karşılaştırıldığında BJQF'deki diferansiyel BA'lar. (B) Model ile karşılaştırıldığında BSF'deki diferansiyel BA'lar. (C) Model ile karşılaştırıldığında JPF'deki diferansiyel BA'lar ve (D) Model ile karşılaştırıldığında QCF'deki diferansiyel BA'lar. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Fekal safra asitleri ile bağırsak mikrobiyal bolluğu arasındaki korelasyon
Diferansiyel filumlar ile diferansiyel SA'lar arasında Spearman korelasyon analizi gerçekleştirilmiştir (Şekil 6A–F, Şekil 7A–D). Kordon grafikleri |r| ≥ 0,8 olan korelasyonları göstermektedir (Şekil 6B, 6D, 6F). Model ve kontrol karşılaştırmasında, 23-DCA; Saccharibacteria ve Firmicutes ile pozitif, Proteobacteria ve Bacteroidetes ile negatif korelasyon göstermiştir (Şekil 6B). BJQF ve model karşılaştırmasında, Proteobacteria; TLCA-3S, LCA-3S, TCA, α-MCA, 6,7-DKLCA, HCA, CDCA ve THCA ile ilişkilendirilmiştir (Şekil 6D). BSF ve model karşılaştırmasında, Proteobacteria; TDCA, 6,7-DKLCA ve LCA-3S ile pozitif korelasyon gösterirken; Saccharibacteria; GUDCA ve 23-DCA ile pozitif korelasyon göstermiştir (Şekil 6F).
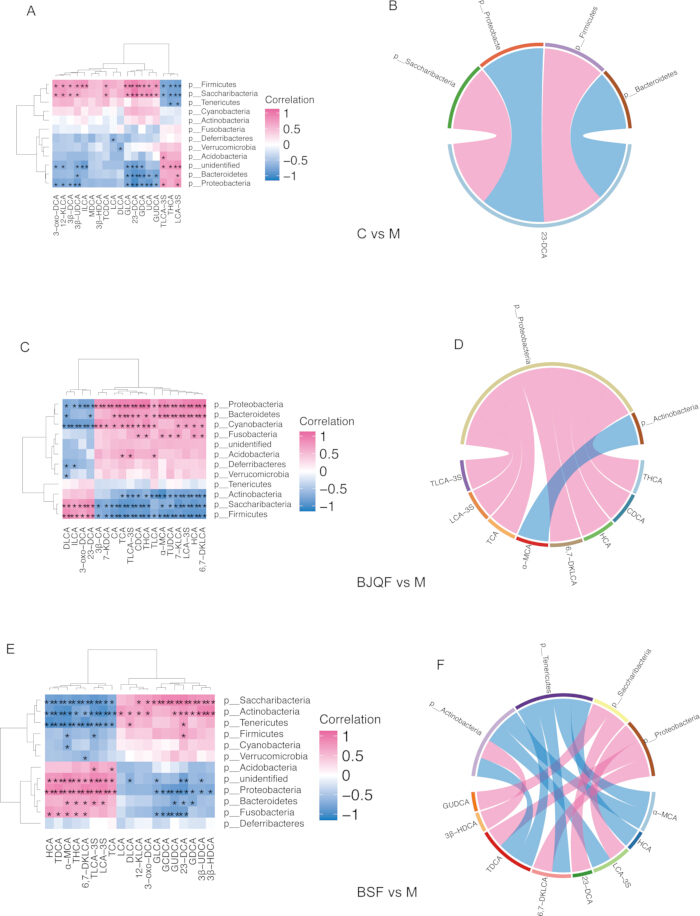
Şekil 6: Dışkıdaki diferansiyel safra asitleri (BA'lar) ile filum düzeyindeki diferansiyel bakterilerin bolluğu arasındaki korelasyonlar. (A, C, E) Sırasıyla Kontrol ve Model, BJQF ve Model ile BSF ve Model grupları için Spearman korelasyon analizleri. (B, D, F) Sırasıyla Kontrol ve Model, BJQF ve Model ile BSF ve Model grupları için güçlü korelasyonları (|r| ≥ 0,8) gösteren ilgili kiriş diyagramları. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Kiriş diyagramları |r| ≥ 0,8 olan korelasyonları göstermektedir (Şekil 7B, 7D). JPF ile model karşılaştırmasında, Saccharibacteria; TLCA-3S, LCA-3S ve HCA ile negatif ilişkiliyken, 23-DCA ile pozitif korelasyon göstermiştir (Şekil 7B). QCF ile model karşılaştırmasında, Saccharibacteria; HCA, CA, LCA-3S, THCA ve TLCA-3S ile negatif korelasyon, 23-DCA ile ise pozitif korelasyon göstermiştir (Şekil 7D). Bu sonuçlar, farklı TCM formüllerinin bakteri-BA etkileşim ağını farklı paternler üzerinden modüle ettiğini göstermektedir.
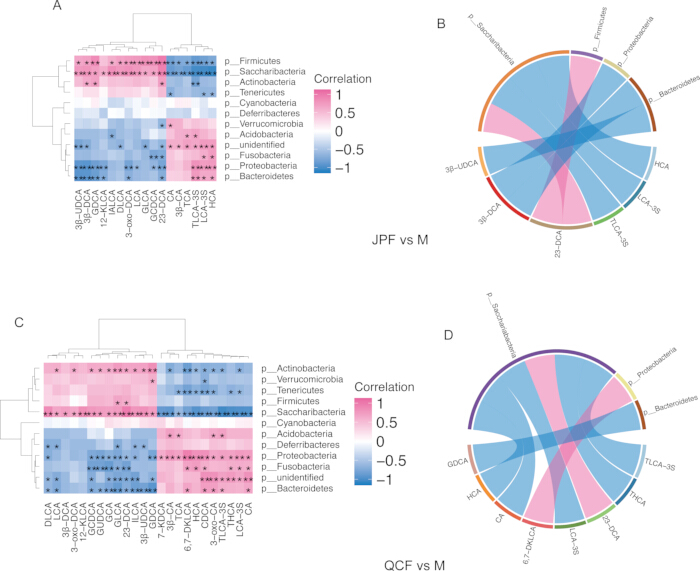
Şekil 7: Farklılaşan fekal safra asitleri (BA) ile farklılaşan bakterilerin bolluğu arasındaki korelasyonlar. (A, C>) Sırasıyla JPF'ye karşı Model ve QCF'ye karşı Model grupları için Spearman korelasyon analizleri. (B, D>) Sırasıyla JPF'ye karşı Model ve QCF'ye karşı Model grupları için güçlü korelasyonları (|r| ≥ 0,8) gösteren ilgili akor diyagramları. Kırmızı pozitif korelasyonları, mavi ise negatif korelasyonları belirtmektedir. p < 0,05, p < 0,01. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
VERİ KULLANIMI:
Tüm ham veriler NCBI Sequence Reads Archive (SRA) veri tabanına yüklenmiştir (Erişim Numarası: PRJNA749732). https://www.ncbi.nlm.nih.gov/bioproject/PRJNA749732
Tartışma
Bu çalışma, BJQF'nin ve ayrıştırılmış alt formüllerinin, bağırsak mikrobiyotası-safra asidi metabolik aksı aracılığıyla DSS ile indüklenen ÜK'yi hafifletmedeki terapötik mekanizmasını araştırmaktadır. Bu multi-omik analiz, BJQF'nin ÜK ile ilişkili mikrobiyal disbiozisle onararak ve fekal BA havuzunu normalize ederek anti-kolit etkiler gösterdiğini öne sürmektedir. Alt formüller, modüle özgü belirgin düzenleyici etkiler sergilemektedir; JPF'nin tam formüle en benzer etkinliği göstermesi, Jianpi stratejisinin temel rolünü ortaya koymaktadır. Yazarlar ayrıca, mikrobiyal yeniden şekillenme ve ÜK iyileşmesini birbirine bağlayan temel bir BA düğümü olarak 23-DCA'yı ve potansiyel etkinlik biyobelirteçleri olarak TLCA-3S/LCA-3S'yi tanımlamaktadırlar.
BJQF aracılı mikrobiyal disbiyozun geri döndürülmesi, potansiyel olarak BA havuzunun normalleşmesi ve inflamasyonun azalmasıyla ilişkilidir. ÜK, immün-mikrobiyota-metabolizma ağı disregülasyonu tarafından tetiklenir ve temel filum dengesizliği hem hastalarda hem de hayvan modellerinde tipik bir özelliktir10. Bu sonuçlar, DSS kaynaklı ÜK sıçanlarının, klinik ÜK profilleriyle uyumlu olarak, azalmış Firmicutes ve Lactobacillus ile artmış Bacteroidetes ve Proteobacteria sergilediğini doğrulamaktadır11. BJQF ve JPF bu anormallikleri en etkili şekilde geri döndürürken, BSF ve QCF orta düzeyde etkiler göstermiştir. Lactobacillus ve Clostridium gibi Firmicutes taksonlarının, sekonder BA biyosentezi için temel enzimatik mekanizmaya sahip olduğu iyi belgelendiğinden12, bu durum potansiyel bir ilişkisel bağa işaret etmektedir: BJQF, özellikle Jianpi modülü, BA biyosentetik kapasitesine sahip Firmicutes'leri geri döndürür ve bu durum sekonder BA biyotransformasyonunu artırarak metabolik bozukluğu düzeltebilir. Cins düzeyinde BJQF ve JPF; Bacteroides, Ruminococcus_2, Enterorhabdus ve Corynebacterium_1'deki ÜK kaynaklı değişiklikleri de tersine çevirerek disbiyozu ve BA senteziyle ilgili fonksiyonları daha da onarmıştır.
Mikrobiyal disbiozisin düzeltilmesi, antikolitik etkilerin temel bir metabolik mekanizması olan BA havuzunun normalleşmesine katkıda bulunabilir. BA metabolizması mikrobiyal aktiviteye yüksek düzeyde bağımlıdır ve sekonder BA'lar, immün homeostaz ve bariyer bütünlüğü için kritiktir13. LC-MS/MS verileri, UC sıçanlarının azalmış koruyucu sekonder BA'lar (23-DCA, 3-oxo-DCA, DLCA) ve birikmiş sülfatlanmış BA'lar (TLCA-3S, LCA-3S) sergilediğini göstermektedir; bu durum, UC ile ilişkili BA disregülasyonuna dair önceki raporlarla tutarlıdır14. Sülfatlanmış BA'ların intestinal emilimi düşüktür ve enterohepatik dolaşıma giremezler15; dolayısıyla bunların birikimi, bozulmuş BA metabolizmasını yansıtır ve pro-inflamatuar yolak aktivasyonu ile ilişkilidir16. Tüm formüller bu bozukluğu tersine çevirmiş olup, BJQF ve JPF en güçlü etkileri göstermiştir.
Korelasyon analizi, 23-DCA'nın temel filum değişiklikleri ile ilişkili ana BA düğümü olduğunu doğrulamaktadır: Firmicutes ile pozitif, Proteobacteria ile negatif korelasyon göstermektedir. Antiinflamatuar ve bariyer koruyucu etkileri olan ikincil bir BA olarak17, 23-DCA'nın BJQF/JPF tarafından yukarı regüle edilmesi potansiyel olarak Firmicutes zenginleşmesine ve artan biyosenteze atfedilmektedir; ayrıca azalmış sitokinler ve iyileşmiş histoloji ile korelasyon göstermektedir. Bu korelasyonel bulgulara dayanarak yazarlar hipotetik bir mekanistik model önermektedir: BJQF Firmicutes bolluğunu geri kazandırır > mikrobiyal ikincil BA biyosentezini artırır > koruyucu 23-DCA'yı yukarı regüle eder > bağırsak inflamasyonunu inhibe eder. Bu modelin fonksiyonel deneylerle doğrulanması gerekmektedir.
Bu çalışma, BJQF fonksiyonel modüllerini spesifik mikrobiyal ve metabolik değişikliklerle eşleştirerek Geleneksel Çin Tıbbı (TCM) teorisi ile modern moleküler biyoloji arasında bir köprü kurmaktadır. Jianpi kavramı temel bağlantıyı oluşturmaktadır. "Dalak ve böbrek arasındaki karşılıklı güçlendirme" TCM teorisiyle18 uyumlu olarak, BSF orta düzeyde Firmicutes zenginleşmesi ve 23-DCA artışı göstermiştir. QCF temel olarak Verrucomicrobia (Akkermansia) zenginleştirmiş ve zenobiyotik metabolizmayı düzenlayarak "nem-ısıyı temizleme" etkisini yansıtmıştır. Formülün tamamı, herhangi bir tekil modülden daha üstün sinerjik etkiler göstererek, sendrom farklılaştırmasına dayalı TCM bileşik tasarımının rasyonelliğini doğrulamaktadır.
Korelasyon analizi, her bir formül tarafından şekillendirilen belirgin bakteri–safra asidi (BA) etkileşim ağlarını daha ayrıntılı olarak ortaya koymaktadır. Bu farklar, modüle özgü düzenleyici özellikleri yansıtmakta ve bireyselleştirilmiş klinik uygulama için bir temel oluşturmaktadır: Firmicutes merkezli disbiyozis ile seyreden dalak eksikliği baskın ÜK için JPF, mukozal bariyer hasarı ile seyreden nem-ısı baskın ÜK için QCF ve klasik kombine sendrom için tam BJQF. Bulgularla uyumlu olarak, güncel çalışmalar da bağırsak mikrobiyota–safra asidi eksenini ÜK ve Geleneksel Çin Tıbbı (TCM) müdahalesi için temel bir terapötik hedef olarak desteklemektedir19,20,21,22. Mikrobiyal disbiyozis kaynaklı sekonder BA eksikliği, aktif ÜK'nin temel bir özelliğidir ve BA homeostazının yeniden sağlanması inflamasyonu ve mukozal hasarı etkili bir şekilde hafifletebilir23.
Bu çalışmanın birkaç kısıtlaması bulunmaktadır. İlk olarak, mikrobiyal yeniden şekillenme ile BA normalizasyonu arasındaki tüm ilişkiler korelasyonel multi-omik analizlere dayanmaktadır; nedensel ilişkiler, fekal mikrobiyota transplantasyonu gibi fonksiyonel deneylerle doğrulanmamıştır. İkinci olarak, örneklem büyüklüğü nispeten orta düzeydedir ve bu durum istatistiksel gücü ve genellenebilirliği sınırlayabilir. Üçüncü olarak, yalnızca fekal BA'lar kantifiye edilmiştir; enterohepatik dolaşımı yansıtan serum ve mukoza BA profilleri ölçülmemiştir. Dördüncü olarak, mikrobiyota ve BA'yı düzenlemekten sorumlu spesifik aktif fitokimyasallar tanımlanmamıştır. Gelecekteki çalışmalar, FMT ve germ-free hayvan deneyleri aracılığıyla nedensel ilişkileri doğrulayacak, BJQF'nin temel aktif bileşenlerini belirleyecek ve translasyonel değeri doğrulamak için klinik pilot çalışmalar yürütecektir.
Açıklamalar
Yazarların beyan edecek herhangi bir çıkar çatışması yoktur.
YAZARLARIN KATKISI:
Hongyu Chen; çalışmanın kavramsallaştırılmasına, metodolojisine, doğrulanmasına, formal analizine, incelemesine, görselleştirmesine ve taslak metnin yazımına katkıda bulunmuştur. Song Zhao; metodolojiye, proje yönetimine, incelemeye, görselleştirmeye, finansman teminine ve taslak metnin yazımına katkıda bulunmuştur. Luzhou Xu; kavramsallaştırmaya, kaynak sağlanmasına, taslağın gözden geçirilmesine ve düzenlenmesine, proje yönetimine ve çalışmanın genel süpervizyonuna katkıda bulunmuştur.
Teşekkürler
Bu çalışma, Çin Ulusal Doğa Bilimleri Vakfı (81774243) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.2 mL PCR Tüpleri | Axygen | PCR-02-C | 16S rRNA geni PCR amplifikasyon reaksiyonları için |
| 1.5 mL Steril Santrifüj Tüpleri | Axygen | MCT-150-C | Numune toplama, saklama ve santrifügasyon için steril kaplar |
| %10 Nötr Tamponlu Formalin | Solarbio Science & Technology | 1008128 | Kolon doku örneklerinin fiksasyonu için |
| 6500 QTRAP MS/MS Sistemi | Sciex | 5009065 | Fekal safra asitlerinin MRM tabanlı kantitatif profillemesi için |
| -80 ºC Ultra Düşük Sıcaklık Dondurucu | Thermo Fisher Scientific | 702-UR | Fekal numunelerin ve biyolojik örneklerin kriyoprezervasyonu için |
| Agaroz | Sigma-Aldrich | A9539 | Jel elektroforezi yoluyla DNA bütünlüğünün tespiti için |
| Alpiniae Oxyphyllae Fructus | Nanjing TCM Co., Ltd. | Batch 20230321 | Ham bitkisel materyal, doz başına 15 g, BJQF ve BSF'de kullanılır |
| Astragali Radix | Nanjing TCM Co., Ltd. | Batch 20230312 | Ham bitkisel materyal, doz başına 15 g, BJQF ve JPF'de kullanılır |
| Aucklandiae Radix | Nanjing TCM Co., Ltd. | Batch 20230217 | Ham bitkisel materyal, doz başına 6 g, BJQF ve QCF'de kullanılır |
| Safra Asidi Standart Karışımı | Sigma-Aldrich | B4893 | Fekal safra asitlerinin kalitatif ve kantitatif kalibrasyonu için |
| Coptidis Rhizoma | Nanjing TCM Co., Ltd. | Batch 20230118 | Ham bitkisel materyal, doz başına 4 g, BJQF ve QCF'de kullanılır |
| Dekstran sülfat sodyum (DSS, 36–50 kDa) | MP Biomedicals | 160110 | Sıçan UC indüksiyonu için, 10 ardışık gün boyunca %3,5 (ağırlık/hacim) içme solüsyonu olarak hazırlandı |
| Glycyrrhizae Radix | Nanjing TCM Co., Ltd. | Batch 20230411 | Ham bitkisel materyal, doz başına 5 g, BJQF ve JPF'de kullanılır |
| GraphPad Prism | GraphPad Software | v7.00 | İstatistiksel analiz, anlamlılık testi ve bilimsel grafik çizimi için |
| Hematoksilin-Eozin (H&E) Boyama Kiti | Beyotime Biotechnology | C0105S | Kolon doku kesiti boyama, histopatolojik gözlem ve inflamasyon skorlaması için |
| Yüksek Hızlı Soğutmalı Santrifüj | Eppendorf | 5810R | Nükleik asit ekstraksiyonu ve metabolomik hazırlıkta numune santrifügasyonu için |
| HPLC Derecesi Metanol | Merck KGaA | 1.06007.4008 | LC-MS/MS numune hazırlama ve mobil faz hazırlama için |
| Illumina MiSeq Sekanslama Platformu | Illumina Inc. | SY-410-1003 | 16S rRNA geni yüksekle geçirgen sekanslama ve bağırsak mikrobiyota profillemesi için |
| KEGG Veritabanı | Kanehisa Laboratories | Release 107.0 | Mikrobiyal fonksiyonel yolak anotasyonu için |
| Erkek SPF derecesi SD sıçanlar | Shanghai Xipu-Bikai Experimental Animal Co., Ltd. | / | UC model oluşturma ve takip deneyleri için 200 ± 20 g ağırlığında 44 sıçan |
| Multiskan™ GO Mikroplaka Okuyucu | Thermo Fisher Scientific Oy | 51119080 | ELISA absorbans okuma ve sitokin kantifikasyonu için |
| NanoDrop 2000 Spektrofotometre | Thermo Fisher Scientific | ND-2000 | Fekal bakteriyel genomik DNA'nın kantifikasyonu ve saflık değerlendirmesi için |
| Parafin Gömme Kasetleri | Leica Biosystems | 3801520 | Kolon dokusuy suyunun uzaklaştırılması ve parafinle gömme için |
| PowerFecal® DNA İzolasyon Kiti | MoBio (Qiagen) | 12830-50 | Fekal bakteriyel genomik DNA ekstraksiyonu ve saflaştırması için |
| Psoraleae Fructus | Nanjing TCM Co., Ltd. | Batch 20230129 | Ham bitkisel materyal, doz başına 15 g, BJQF ve BSF'de kullanılır |
| R İstatistiksel Ortamı | R Foundation for Statistical Computing | v4.2.0 | Biyoenformatik analiz ve istatistiksel hesaplama için |
| Sıçan IL-10 ELISA Kiti | Lun Chang Shuo Biotech | YD-30194 | Serum IL-10 konsantrasyonunun kantitatif tespiti için |
| Sıçan IL-1β ELISA Kiti | Lun Chang Shuo Biotech | YD-30206 | Serum IL-1β konsantrasyonunun kantitatif tespiti için |
| Sıçan TNF-α ELISA Kiti | Lun Chang Shuo Biotech | YD-31063 | Serum TNF-α konsantrasyonunun kantitatif tespiti için |
| Sanguisorbae Radix | Nanjing TCM Co., Ltd. | Batch 20230309 | Ham bitkisel materyal, doz başına 10 g, BJQF ve QCF'de kullanılır |
| Scutellariae Radix | Nanjing TCM Co., Ltd. | Batch 20230407 | Ham bitkisel materyal, doz başına 10 g, BJQF ve QCF'de kullanılır |
| Shim-pack UFLC UPLC Sistemi | Shimadzu Corporation | CBM-20A | Fekal safra asidi numunelerinin kromatografik ayrımı için |
| Kavrulmuş Atractylodis Macrocephalae Rhizoma | Nanjing TCM Co., Ltd. | Batch 20230225 | Ham bitkisel materyal, doz başına 10 g, BJQF ve JPF'de kullanılır |
Kaynaklar
- Gilbert JA, et al. Current understanding of the human microbiome. Nat Med. 2018;24(4):392-400.
- Fiorucci S, et al. Bile acid signaling in inflammatory bowel diseases. Dig Dis Sci. 2021;66(3):674-693.
- Sinha SR, et al. Dysbiosis-induced secondary bile acid deficiency promotes intestinal inflammation. Cell Host Microbe. 2020;27(4):659-670.e5.
- Zhan K, et al. Gut microbiota-bile acid crosstalk in diarrhea-irritable bowel syndrome. Biomed Res Int. 2020;2020:3828249.
- Zhang C, Jiang M, Lu A. Considerations of traditional Chinese medicine as adjunct therapy in the management of ulcerative colitis. Clin Rev Allergy Immunol. 2013;44(3):274-283.
- Zhang S, et al. Consensus on Chinese medical diagnosis and treatment of ulcerative colitis (2009). Chin J Integr Tradit West Med. 2010;30(5):527-532.
- Chen YL, et al. Systems pharmacology approach reveals protective mechanisms of Jian-Pi Qing-Chang decoction on ulcerative colitis. World J Gastroenterol. 2019;25(21):2603-2622.
- Hu J, et al. Qingchang Huashi Formula attenuates DSS-induced colitis in mice by restoring gut microbiota-metabolism homeostasis and goblet cell function. J Ethnopharmacol. 2021;266:113394.
- Cooper HS, et al. Clinicopathologic study of dextran sulfate sodium experimental murine colitis. Lab Invest. 1993;69(2):238-249.
- Zuo T, Ng SC. The gut microbiota in the pathogenesis and therapeutics of inflammatory bowel disease. Front Microbiol. 2018;9:2247.
- Kobayashi T, et al. Ulcerative colitis. Nat Rev Dis Primers. 2020;6(1):74.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41-50.
- Joyce SA, Gahan CGM. Bile acid-microbiota crosstalk in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(11):694-707.
- Duboc H, et al. Connecting dysbiosis, bile-acid dysmetabolism and gut inflammation in inflammatory bowel diseases. Gut. 2013;62(4):531-539.
- Alnouti Y. Bile acid sulfation: A pathway of bile acid elimination and detoxification. Toxicol Sci. 2009;108(2):225-246.
- Ungaro R, et al. Ulcerative colitis. Lancet. 2017;389(10080):1756-1770.
- Tang Y, Li Y, Zhang L, et al. 23-Deoxycholic acid ameliorates colitis by regulating gut microbiota and activating FXR signaling. J Ethnopharmacol. 2022;298:115463.
- Lu YH, Cong LL, Zhang Y. TCM syndrome classification and its correlation with gut microbiota in ulcerative colitis. Chin J Integr Tradit West Med. 2020;40(7):867-871.
- Zhang Y, Li X, Wang H. Traditional Chinese medicine for inflammatory bowel disease: From empirical therapy to mechanism-based treatment. J Ethnopharmacol. 2022;296:115347.
- Li J, Wang Y, Zhang L, et al. Targeting the gut microbiota-bile acid axis: a novel strategy for TCM compound prescriptions in treating chronic inflammatory diseases. Pharmacol Res. 2023;192:106589.
- Abdo W, et al. Gut Microbiota and Bile Acid Metabolism in Inflammatory Bowel Disease: Pathophysiological Links and Therapeutic Implications. Arch Med Res. 2023;54(8):789-801.
- Liu M, et al. Traditional Chinese Medicine Targeting Gut Microbiota-Bile Acid Axis for Ulcerative Colitis: A Systematic Review. Arch Med Res. 2022;53(6):542-553.
- Chen L, et al. Secondary Bile Acids as Key Mediators of Intestinal Mucosal Barrier Protection in Inflammatory Bowel Disease. Arch Med Res. 2023;54(2):189-200.