Bu çalışma, 5xFAD farelerinde Qi-fu-yin (QFY) tedavisini değerlendirmektedir. Bulgular, QFY uygulamasının gelişmiş öğrenme ve hafıza performansı, azalmış serebral Aβ depozisyonu ve hücresel senesans ile serebral kortekste hafifletilmiş sinaptik yapısal hasar ile ilişkili olduğunu göstermektedir.
Araştırma makalesi
Qi-fu-yin'in 5xFAD Farelerin Beyinlerinde Bilişsel Bozukluğun İyileştirilmesi ve Hücresel Yaşlanmanın Azaltılması Üzerindeki Etkileri
* These authors contributed equally
Bu makalede
Özet
Özet
Geleneksel bir Çin tıbbı reçetesi olan Qi-fu-yin'in (QFY) mekanizması henüz tam olarak anlaşılamamış olsa da, Alzheimer hastalığında (AD) terapötik potansiyel göstermiştir. Bu çalışma, QFY tedavisi ile 5xFAD farelerdeki bilişsel bozukluk arasındaki ilişkiyi araştırmayı amaçlamıştır. 5xFAD farelerinin beyinlerindeki Amyloid-β protein 1-42 (Aβ1-42), Aβ1-40, Büyüme ile ilişkili protein 43 (GAP-43), Sinaptofizin (SYN) ve Postsinaptik yoğunluk proteini 95 (PSD-95) seviyelerini değerlendirmek için kavrama gücü, yürüyüş, koloni yuvalama, mekik kutusu, Morris su labirenti testi ve ELISA kullandık. Korteksteki Yaşlılıkla ilişkili salgılayıcı fenotip (SASP) seviyelerini nicelleştirmek için Luminex sitokin analizi kullanılmıştır. Hayvanların beyinlerindeki Yaşlılıkla ilişkili β-galaktosidaz (SA-β-Gal) miktarı, Aβ birikimi ve dendritik dikenler sırasıyla SA-β-Gal boyaması, immünohistokimya ve Golgi-Cox boyaması ile ölçülmüştür. İmmünofloresan testlere göre QFY tedavisi, 5xFAD farelerde kortikal Aβ plak yükünü dramatik şekilde azaltmış ve p21 ekspresyonunu düşürmüştür. 5xFAD farelerde QFY tedavisi öğrenme ve hafıza performansını belirgin şekilde artırmış, yaşlanmayı hafifletmiş ve farelerin korteksindeki GAP-43, PSD-95 ve SYN protein miktarlarını artırmıştır. QFY tedavisi sonrası beyinde Aβ plağı ve SA-β-Gal aktivitesinin yanı sıra hipokampusta Aβ1-42 ve Aβ1-42/Aβ1-40 seviyelerinde anlamlı bir azalma görülmüştür. 5xFAD farelerinin korteksinde IL-1α, IL-1β, IL-6, IL-17A ve IFN-γ seviyeleri önemli ölçüde azalmıştır. PCA ve Pearson korelasyon analizleri, SASP sitokinleri ile sinaptik protein seviyeleri arasında güçlü bir negatif ilişki olduğunu göstermiştir. Bu bulgular, QFY tedavisinin 5xFAD farelerinde yaşa bağlı bilişsel gerileme ve hücresel senesans fenotiplerindeki iyileşmelerle birlikte sinaptik yapısal hasarın hafifletilmesi arasında bir ilişki olduğunu göstermektedir. Bu sonuçlar, QFY'nin Alzheimer hastalığı için potansiyel bir terapötik aday olarak daha fazla araştırılmasını desteklemektedir.
Giriş
Alzheimer's disease (AD)1 is the most prevalent form of dementia, characterized by amyloid-β protein (Aβ), hyperphosphorylated tau proteins (P-Tau), synaptic loss, and chronic inflammation. Currently available medications for AD have a number of side effects and are unable to stop the disease's progression2,3,4,5.
Senescence, which manifests as organism-wide disruptions across cellular and interstitial microenvironments rather than localized organ-specific alterations, is a key risk factor in AD pathogenesis. This systemic dysregulation distinguishes AD progression from single tissue-pathology models by fundamentally changing homeostatic mechanisms across biological systems6,7. Although cellular senescence initially serves as a homeostatic regulatory mechanism, the accumulation of senescent cells eventually causes progressive tissue degradation and persistent inflammatory cascades, fundamentally disrupting physiological homeostasis8. The ensuing inflammation may harm synapses and impair cognitive function9,10.
Cellular senescence is a complex cellular stress response characterized by telomere shortening, permanent cell-cycle arrest, and altered secretory activity11. Additional hallmarks include enlarged, flattened cell morphology, positive senescence-associated β-galactosidase (SA-β-Gal) staining, lipofuscin accumulation, and secretion of SASP factors12. Memory formation is affected by the notable decline in the levels of proteins associated with synaptic plasticity of axons and dendrites, which occurs with cellular senescence13,14. Because synaptic plasticity is essential for learning and memory, disruptions in synaptic proteins contribute to cognitive impairment. These proteins include GAP-43, SYN, and PSD-95. Undoubtedly, synaptic function is affected by reductions in dendritic numbers and functional abnormalities in the brains of the elderly15.
QFY is a traditional Chinese medicine formula derived from Jing Yue Quan Shu. It is composed of Panax ginseng C.A.Mey (Araliaceae), Polygala tenuifolia Willd (Polygalaceae), Rehmannia glutinosa (Gaertn.) Libosch. ex Fisch. & C. A. Mey (Orobanchaceae), Angelica sinensis (Oliv.) Diels (Apiaceae), Glycyrrhiza uralensis Fisch. ex DC. (Fabaceae), Atractylodes macrocephala Koidz (Asteraceae), Ziziphus jujuba Mill. var. spinosa (Bunge) Hu ex H.F. Chou (Rhamnaceae). Research has demonstrated that QFY significantly ameliorates cognitive dysfunction in rats with diabetes-induced brain injury16. Our previous study found that QFY could improve cognitive learning and memory functions impairment in 5xFAD and APP/PS1 mice. In addition, QFY demonstrated high safety in non-clinical studies, and no obvious acute, subacute, or long-term toxic reactions were observed17,18,19. Analysis of the clinical therapeutic effect of QFY showed that AD patients experienced a significant increase in their capacity for activities of daily living and MMSE scores after QFY treatment20. Following three consecutive days of QFY administration in male Sprague-Dawley rats, ten prototype QFY-derived components, including butylidenephthalide, butylphthalide, 20(S)-ginsenoside Rh1, 20(R)-ginsenoside Rh1, and zingibroside R1, were detected in cerebrospinal fluid21,22. However, the therapeutic mechanism of QFY in AD is still unclear. In this study, we investigated the association between QFY treatment, cellular senescence, and AD-related pathological changes in 5xFAD mice.
Although previous studies have demonstrated the neuroprotective effects of QFY in AD models, the specific involvement of cellular senescence in mediating these effects remains unexplored. Moreover, whether QFY confers cognitive benefits through senescence‑associated synaptic preservation, rather than solely through amyloid‑β reduction, has not been addressed. The present study was therefore designed to investigate whether QFY treatment attenuates cellular senescence and whether this attenuation is associated with improved synaptic plasticity in 5xFAD mice.
Protokol
Tüm hayvan deneyleri, Shandong Geleneksel Çin Tıbbı Üniversitesi Deneysel Hayvan Refahı Etik Komitesi tarafından onaylanmıştır (SDUTCM20221101001).
İlaçlar
QFY granül kuru krem tozu, Lunan Pharmaceutical Houpu Araştırma ve Geliştirme Merkezi tarafından hazırlanmış ve test edilmiştir. Donepezil ve Memantine, Shanghai Yuanye Technology'den satın alınmıştır. Bu çalışmada, başlangıç vücut ağırlığı 19–27 g aralığında olan erkek 5xFAD fareler kullanılmıştır. QFY dozu, 43 g/d olan klinik insan dozundan türetilmiş olup, QFY granül kuru krem tozu için ayarlama yapıldıktan sonra 16,297 g/d'ye tekabül etmektedir. Mevcut deney için orta doz, klinik insan dozuna göre hesaplanmıştır (16,297 g/70 kg x 9,1 = 2,11861 g/kg/d). Yüksek doz, orta dozun iki katı (4,24 g/kg/d) ve düşük doz, orta dozun yarısı (1,06 g/kg/d) olarak belirlenmiştir. Tüm ilaç çözeltileri, 10 g vücut ağırlığı başına 0,1 mL hacminde uygulanmıştır.
Pozitif kontrol için donepezil ve memantin hidroklorürün kombine uygulaması kullanılmıştır. Dozlar, mevcut klinik uygulama dozları (sırasıyla 10 mg/gün ve 20 mg/gün) ve araştırma grubumuzdan elde edilen önceki veriler referans alınarak belirlenmiş; sonuç olarak günlük 1.0 mg/kg donepezil ile 2.8 mg/kg memantine'den oluşan, toplamda 3.8 mg/kg'lık bir kombine doz rejimi oluşturulmuştur. Donepezil–memantin karışımının nihai konsantrasyonu, 3.8 mg/kg'ın 10 g vücut ağırlığı başına 0.1 mL olan uygulama hacmine bölünmesiyle hesaplanarak 0.38 mg/mL olarak hazırlanmıştır.
Düşük, orta ve yüksek dozlarda QFY çözeltileri şu şekilde hazırlandı: 5,3 g, 10,6 g ve 21,2 g QFY kuru tozu ayrı 100 mL'lik beherlere yerleştirildi, 30 mL saflaştırılmış su ile iyice karıştırıldı, dereceli silindirlere aktarıldı ve saflaştırılmış su ile son hacmi 50 mL'ye tamamlanarak sırasıyla 0,106 g/mL, 0,212 g/mL ve 0,424 g/mL nihai kütle konsantrasyonları elde edildi. Pozitif kontrol için 5 mg donepezil ve 14 mg memantin saflaştırılmış suda çözüldü ve son hacmi 50 mL'ye ayarlandı. Her gruptaki hayvanlara ilgili ilaç çözeltisi günde bir kez oral gavage yoluyla verildi.
Hayvanlar
5xFAD transgenik fareler [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] laboratuvarda üretilmiştir. Hayvanların tamamı, Shandong Geleneksel Çin Tıbbı Üniversitesi'nde, 22–24 oC sıcaklıkta, %50–60 nemde ve 12 saatlik ışık-karanlık döngüsüne sahip bir SPF ortamında tutulmuştur. Hayvanlara her zaman yem ve su sağlanmıştır.
2,5 aylık erkek 5xFAD fareler rastgele beş gruba ayrıldı: tedavi edilmemiş 5xFAD, donepezil artı memantin, düşük doz QFY, orta doz QFY ve yüksek doz QFY. Yaşları uyumlu erkek yabanıl tip (WT) kardeş fareler WT kontrol grubu olarak kullanıldı. Tedaviler 220 gün boyunca günde bir kez uygulandı. (Şekil 1).
Davranışsal testler
Kavrama kuvveti testi
Farelerin ön üyelerindeki iskelet kası kuvveti, bir kavrama kuvveti ölçer kullanılarak ölçülmüştür23. Deney sırasında, farenin masa yüzeyine paralel kalması sağlanarak test cihazı yatay olarak konumlandırılmıştır. Cihaz açıldıktan sonra, fare nazikçe kavrama plakasına yerleştirilmiştir. Fare plakayı güvenli bir şekilde kavradığında, fare tutuşunu bırakana kadar kuyruğu eşit kuvvetle geriye doğru çekilmiştir. Maksimum kavrama kuvveti kaydedilmiştir. Bu ölçüm üç kez tekrarlanmış ve farenin kavrama kuvvetini belirlemek için bu değerlerin ortalaması kullanılmıştır.
Yürüyüş testi
Farelerin yürüyüş düzenliliği CatWalk XT kullanılarak ölçüldü. Deney, bir eğitim dönemi ve bir test dönemi olarak ikiye ayrıldı24. Deney fareleri, yeni ortama adapte olabilmeleri için bir gün önceden deney odasına aktarıldı. Eğitim dönemi boyunca fareler başlangıç noktasına yerleştirildi ve kanal boyunca bitiş noktasına kadar koşturdular. Her fare günde üç kez eğitildi. 3 günlük eğitimin ardından (her fare kanal boyunca hızla geçebilene kadar), fareler kafeslerine geri götürüldü. Test dönemi, eğitim dönemi ile aynı şekilde gerçekleştirildi ve bilgisayar yazılımı her bir hareket yörüngesini otomatik olarak analiz etti. Yörünge uygunsa yeşil noktalar, uygun değilse turuncu noktalar görüntülendi; her fare için en az üç yeşil noktanın olması uygun kabul edildi ve bunlar CatWalkXT 10.0 yazılımı ile analiz edildi.
Mekik kutusu testi
Farelerde koşullu aktif kaçınma yeteneğini değerlendirmek için mekik kutusu testi kullanılmıştır25. Düzenek, ses yalıtımlı bir bölme içine yerleştirilmiş bir mekik kutusundan (18 cm x 18 cm) oluşmaktaydı. Deney, 4 günlük bir öğrenme döneminin ardından 1 günlük bir test döneminden oluşmuştur. Her öğrenme gününde, eğitim başlamadan önce farelere mekik kutusunda 120 s'lik bir adaptasyon süresi tanınmıştır. Her deneme, 6 s'lik bir koşullu uyaranla (70 dB, 1000 Hz ton ile 500 lux ışık kombinasyonu) başlamış, ardından ızgara taban aracılığıyla uygulanan 3 s'lik 0,3 mA'lik bir ayak şoku verilmiş ve 12 s'lik denemeler arası ara ile sona ermiştir. Eğer fare koşullu uyaran sırasında karşı bölmeye geçerse, şok verilmemiş ve bu yanıt aktif kaçınma olarak kaydedilmiştir. Eğer fare koşullu uyaran sırasında geçmeyip ayak şoku sırasında geçerse, bu bir pasif kaçınma yanıtı olarak kaydedilmiştir. Eğer fare deneme boyunca geçiş yapamazsa, bu bir kaçış başarısızlığı olarak kaydedilmiştir. Eğitim, günde 30 deneme olacak şekilde ardışık 4 gün boyunca tekrarlanmıştır. Test döneminde (5. gün), diğer tüm parametreler öğrenme dönemindekiyle aynı kalırken ayak şoku uygulanmamıştır. Aktif kaçınma yanıtlarının sayısı, öğrenme ve belleğin birincil ölçütü olarak kaydedilmiştir.
Morris su labirenti
Deneysel hayvanların mekansal öğrenme ve bellek yeteneklerini değerlendirmek için Morris su labirenti testi kullanılmıştır26. Deney, 120 cm çapında ve 50 cm derinliğinde bir tankta gerçekleştirilmiştir. Tank bulanık beyaz suyla doldurulmuş ve sıcaklık 21 °C'de sabit tutulmuştur. Quadrantlardan birine, su yüzeyinin 1 cm altına 10 cm çapında bir platform yerleştirilmiştir. Fareler için mekansal işaretleyiciler olarak havuzun etrafına görsel ipuçları yerleştirilmiştir. Öğrenme süreci, her günün oturumuna üç quadranttan birinde başlanarak ardışık dört gün boyunca yürütülmüştür. Başlangıç pozisyonları, dört ana yön arasında sözde rastgele olarak değiştirilmiştir. Her denemede, hayvan platforma başarıyla ulaştığında prosedür sonlandırılmıştır. Maksimum deneme süresi 60 s olarak belirlenmiştir; hayvanın bu süre zarfında platformu bulamaması durumunda, platforma dikkatle yönlendirilmiştir. Platforma ulaştıktan sonra, hayvan ev kafesine geri götürülmeden önce kısa bir 10 s mola verilmiştir. Öğrenme süreci sona erdikten 24 saat sonra test süreci başlamıştır. 5. günde fareler, platformun karşı quadrantından yerleştirilmiştir. Test sürecindeki kaçış latansı, hedef quadranttaki hareket süresi ve orijinal su altı platform alanının geçiş sayısı kaydedilmiştir.
Koloni iç içe geçme testi
Deney hayvanlarının günlük aktiviteleri, koloni yuva yapma testi kullanılarak değerlendirilmiştir27. Deney, grup başına üç hayvanla 24 sa boyunca sürdürülmüştür. İlacın verildiği aynı gün yeni kafesler kurulmuş, yuva yapımı için içine 6 g yumuşak kağıt serilmiş ve 6. saat, 12. saat ile 24. saatlerde fotoğraflar çekilmiştir. Deney sonunda; kağıtlar kafesin her yerine dağılmışsa ve hiç ısırılmamışsa 1 puan verilmiştir. Kağıt parçaları kafesin kenarında toplanmış ancak gevşek haldeyse, oluşmuş bir yuva yoksa ve belirgin bir yırtılma veya katlama görülmüyorsa 2 puan verilmiştir; Kağıt parçaları toplanmış ve belirgin bir yırtılma olmaksızın oluşmuş ancak nispeten düz bir yuva haline getirilmişse 3 puan verilmiştir; Yaygın şekilde parçalanmış kağıtlardan oluşan derin bir yuvaya ise 4 puan verilmiştir. Deney sonunda, kalan yırtılmamış doku (parçalanmamış veya yuvaya dahil edilmemiş, ağırlığı >0.1 g olan kağıt fragmanları olarak tanımlanmıştır) dikkatlice toplanmış, havada kurutulmuş ve elektronik bir terazi (hassasiyet: 0.01 g) kullanılarak tartılmıştır.
Örnekleme ve örnek toplama
Yalnızca WT, 5xFAD ve QFY (2,12 g/kg/gün) gruplarından örnek topladık. CO2 asfiksiyasyonun ardından başlar kesildi, hipokampus ve korteksi ayırmak için sağ hemisfer hızla açıldı, fosfat tamponlu salin (PBS) ile durulandı ve sıvı nitrojen içindeki 1,5 mL'lik dondurma tüplerine yerleştirildi. Biyokimyasal testler için -80 oC'de saklandı. Sol hemisfer, 24 saat boyunca %4 paraformaldehit içine daldırılarak sabitlendi, mutlak etanol içine daldırılarak susuzlaştırıldı, parafin mumuna gömüldü, 5 µm kalınlığında dilimlendi ve immünohistokimyasal tespit için deparafinize edildi.
Enzim bağlantılı immünosorbent assay (ELISA)
Beyin dokularındaki hedef protein düzeylerini belirlemek için ELISA'lar gerçekleştirildi. Hipokampal homojenatlardaki Aβ1–40 ve Aβ1–42 içerikleri ticari kitler kullanılarak ölçülürken; GAP-43, PSD-95 ve SYN'nin kortikal düzeyleri Jiangsu Enzyme Immunoassay Industry'den temin edilen kitler kullanılarak belirlendi. Tüm prosedürler, üretici protokollerine kesinlikle uygun olarak yürütüldü. Standart serileri, kit talimatları takip edilerek seri dilüsyon ile hazırlandı. Mikroplaka düzeni; boş kuyucuklar, standart kuyucuklar, 5xFAD örnek kuyucukları, QFY ile işlem görmüş (2.12 g/kg/d) örnek kuyucukları ve yabani tip kuyucukları içeriyordu. Yüklemeden önce tüm örnekler, sağlanan dilüent ile iki kat seyreltildi. Reaktifler, pipet ucu kuyucuk tabanına dik tutularak eklendi ve ardından tam karışımı sağlamak için nazikçe çalkalandı.
Plaka mühürlemesinden sonra, ilk inkübasyon 37 °C'de 30 dk boyunca gerçekleştirildi. Bu süre zarfında, konsantre stok çözeltinin ultrapure su ile 1:29 oranında (1 mL konsantreye 29 mL su) seyreltilmesiyle yıkama tamponu hazırlandı. İnkübasyonun ardından mühürleme filmi çıkarıldı, sıvı döküldü ve plaka kurulanarak temizlendi. Daha sonra her kuyuya 200 µL yıkama tamponu eklendi, 30 s bekletildi ve boşaltıldı; bu döngü 5 kez tekrarlandı. Ardından, boşlar hariç tüm kuyucuklara enzimle işaretli reaktif (50 µL) eklendi, plaka tekrar mühürlendi ve 37 °C'de 30 dk boyunca inkübe edildi; bunu aynı beş döngülü yıkama adımı takip etti.
Renk gelişimi için, her kuyucuğa önce 50 µL kromojen çözelti A, ardından 50 µL kromojen çözelti B eklenmiş ve her ekleme sonrası nazikçe karıştırılmıştır. Plaka, karanlıkta 37 °C'de 10 dk boyunca inkübe edilmiştir. Enzimatik reaksiyon, kuyucuk başına 50 µL durdurma çözeltisi eklenerek sonlandırılmış; bu işlem mavi rengi hızla sarıya dönüştürmüştür. Absorbans (optik yoğunluk), boş kuyucuklar referans alınarak bir mikroplaka okuyucu ile 450 nm'de ölçülmüştür; tüm okumalar reaksiyon durdurulduktan sonraki 15 dk içinde gerçekleştirilmiştir.
Luminex
Kortikal SASP faktör seviyeleri, tüm prosedürler üretici talimatlarına uygun olarak gerçekleştirilmek suretiyle Bio‑Plex Pro Mouse Cytokine 23‑plex Assay kiti kullanılarak ölçülmüştür. Reaktifler 4 °C'lik depolama alanından çıkarılmış ve kullanımdan önce 30 dk boyunca oda sıcaklığına dengelenmeye bırakılmıştır. Kit protokolüne göre, yedi noktalı bir standart eğri ve bir boş kuyucuk oluşturmak için standart stoklar seri olarak dilüe edilmiştir. Manyetik boncuklar önceden karıştırılmış ve önerilen çalışma konsantrasyonuna dilüe edilmiş; deteksiyon antikorları çalışma çözeltileri olarak hazırlanmış ve yıkama tamponu konsantresi deiyonize su ile 1x olacak şekilde dilüe edilmiştir. PE‑streptavidin konjuge, sağlanan dilüsyon tamponu kullanılarak 1x olacak şekilde dilüe edilmiştir.
Analiz için; boncuk süspansiyonu, standartlar, kalite kontrolleri ve dilüe edilmiş doku örnekleri (5.6 µg/µL), plaka düzenine göre belirlenen kuyucuklara sırasıyla 50 µL eklenmiştir. Ardından plaka kapatılmış ve 800 rpm orbital çalkalama ile 4 °C'de gece boyunca inkübe edilmiştir. İnkübasyonun ardından, boncuklar her kuyucuğa 200 µL yıkama tamponu eklenerek üç kez yıkanmıştır. Sonrasında, her kuyucuğa 50 µL hazırlanan deteksiyon antikoru eklenmiş ve plaka, 800 rpm çalkalama ile oda sıcaklığında 1 sa boyunca inkübe edilmiştir. Üç yıkama döngüsünden sonra 50 µL PE‑streptavidin çalışma çözeltisi eklenmiş ve plaka, aynı çalkalama koşulları altında oda sıcaklığında 30 dk daha inkübe edilmiştir. Son bir yıkama aşaması gerçekleştirilmiş (üç kez 200 µL yıkama tamponu ile), ardından her kuyucuğa 150 µL yıkama tamponu eklenmiş ve plaka, Bio‑Plex cihazında okunmadan önce oda sıcaklığında 800 rpm ile 2 dk boyunca çalkalanmıştır.
SA-β-Gal boyaması ve immünohistokimya
SA-β-Gal boyaması, Senescence β-Galactosidase Staining Kit talimatlarına uygun olarak gerçekleştirildi. SA-β-Gal boyamasının ardından, kesitler sitrat tamponunda (pH 6.0) ısıtılarak antijen geri kazanım işlemine tabi tutuldu. Endojen peroksidaz aktivitesi, kesitlerin oda sıcaklığında 10 dk boyunca peroksidaz bloklama solüsyonu içinde inkübe edilmesiyle engellendi. Ardından kesitler, tavşan monoklonal anti‑Aβ₁-₄₂ antikoru (1:400) ile 4 °C'de gece boyunca inkübe edildi. Yıkama işleminden sonra kesitler, oda sıcaklığında 20 dk boyunca anti‑tavşan/fare IgG sekonder antikoru ile inkübe edildi. Tekrar yıkama işleminin ardından, immünoreaktivite DAB ile 2 dk boyunca görselleştirildi. Son olarak kesitler, mikroskobik inceleme için dehidre edildi, şeffaflaştırıldı ve nötr rezin ile lam üzerine monte edildi.
İmmünofloresan
İmmünofloresan boyama için, parafin kesitler ksilen ile deparafimize edildi (3 x 15 dk) ve dereceli bir etanol serisi ile (100%, 95% ve 75%; her biri 2 x 5 dk) yeniden hidrate edildi. Antijen geri kazanımı, kesitlerin 1x sodyum sitrat tamponu içerisinde 95 °C'de 30 dk boyunca bekletilmesi ve ardından oda sıcaklığına kadar kademeli olarak soğutulmasıyla gerçekleştirildi. Tween 20 içeren fosfat tamponlu salin (PBST) ile üç kez durulandıktan sonra (her biri 5 dk), kesitler %0,3 Triton X‑100 içeren %10 normal keçi serumu ile oda sıcaklığında 90 dk boyunca permeabilize edildi ve bloklandı. Kesitler daha sonra p21/CIP1/CDKN1A (1:200) ve Aβ₁‑₄₂ (1:400) primer antikorları ile 37 °C'de 2 saat boyunca inkübe edildi. PBST ile dört yıkama işleminin (her biri 5 dk) ardından, kesitler türe uygun Alexa Fluor-konjuge sekonder antikorlar (1:500) ile karanlıkta 37 °C'de 2 saat boyunca inkübe edildi. Ek yıkama işlemlerinden sonra (PBST ile 4 x 5 dk), kesitler DAPI içeren antifade montaj ortamı ile kapatıldı ve floresan mikroskobu kullanılarak görüntülemesi yapıldı.
Golgi-Cox boyama
Golgi‑Cox boyaması, üretici talimatlarına uygun olarak ticari bir kit kullanılarak gerçekleştirilmiştir. A ve B çözeltileri, deneyden 24 saat önce karıştırılmıştır. Fareler ötanize edildikten sonra beyin dokuları hızla çıkarılmış, PBS ile durulanmış ve A ve B çözeltileri karışımına daldırılmıştır. Dokular, oda sıcaklığında karanlıkta 6 saat boyunca bekletilmiş; ardından impregnasyon çözeltisi taze çözeltiyle değiştirilmiş ve inkübasyon oda sıcaklığında karanlıkta 2 hafta daha devam ettirilmiştir (beyin dokusu başına en az 2 mL impregnasyon çözeltisi). Ardından dokular C Çözeltisine aktarılarak 24 saat inkübe edilmiş, sonrasında taze C Çözeltisi ile değiştirilerek oda sıcaklığında karanlıkta 7 gün daha inkübe edilmiştir. Beyin dokuları, bir vibratom kullanılarak 100 µm kalınlığında kesilmiştir. Kesitler jelatin kaplı lamlara yerleştirilmiş ve oda sıcaklığında 3 gün kurumaya bırakılmıştır. Lamlar distile su ile iki kez durulanmış (her biri 5 dk), ardından D Çözeltisi, E Çözeltisi ve distile su karışımına (1:1:2 oranı) 15 dakika daldırılmıştır. Distile su ile yapılan iki ek durulamanın ardından (her biri 5 dk), kesitler dereceli etanol çözeltileriyle (%50, %75 ve %95; her biri 5 dk) dehydre edilmiş, ardından mutlak etanolde dört kez (her biri 4 dk) ve ksilenle üç kez (her biri 5 dk) durulanmıştır. Son olarak, kesitler kapatma medyumu ile lamellenmiştir. Görüntüler bir mikroskopla alınmış ve dendritik diken yoğunluğu ImageJ kullanılarak nicelendirilmiştir.
İstatistiksel analiz
Tüm sonuçlar ortalama ± SD olarak rapor edilmiştir. Veriler GraphPad Prism 8.1.0 kullanılarak analiz edilmiş ve grafikleştirilmiştir. İki grubun karşılaştırılması için Student’s t-testi kullanılmıştır. Birden fazla grubu içeren karşılaştırmalar için tek yönlü ANOVA kullanılmış ve ikili karşılaştırmalar Dunnett testi ile gerçekleştirilmiştir. İstatistiksel anlamlılık p < 0.05 olarak belirlenmiştir.
Çok değişkenli ve korelasyon analizleri
WT, 5xFAD ve QFY (2,12 g/kg/gün) grupları arasındaki (n = grup başına 8) SASP faktörlerinin (IL-1α, IL-1β, IL-6, IL-17A, IFN-γ, CCL3, CCL4 ve CCL5) grup bazlı kümelenmesini görselleştirmek için GraphPad Prism 8.0.1 kullanılarak temel bileşen analizi (PCA) gerçekleştirildi. Skor grafiği, ilk iki temel bileşene göre oluşturuldu. PCA öncesinde herhangi bir veri dönüşümü uygulanmadı. SASP faktörleri ile sinaptik proteinler (PSD-95, GAP-43 ve SYN) ve ayrıca Aβ₁₋₄₀, Aβ₁₋₄₂ ve Aβ₁₋₄₂/Aβ₁₋₄₀ oranı arasındaki doğrusal ilişkileri değerlendirmek için Pearson korelasyon analizi yapıldı. Analiz, iki kuyruklu anlamlılık eşiği p < 0,05 olacak şekilde GraphPad Prism kullanılarak gerçekleştirildi. İlişkilerin gücünü ve yönünü görselleştirmek için korelasyon matrisleri ve bir ısı haritası oluşturuldu.
Sonuçlar
Administration of QFY enhances learning and memory in 5xFAD mice
After QFY administration, a shuttle box test was conducted to assess the conditional active avoidance response of mice (Figure 2A–C). The results showed the number of active avoidances on days 1-4 (Figure 2A, p < 0.05) and the area under the curve (AUC) of active avoidance (Figure 2B, p < 0.01) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05) during the test period were significantly reduced in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly increased the number of active avoidances on day 2 during the learning period in 5xFAD mice (Figure 2A, p < 0.05). The administration of QFY significantly increased the number of active avoidances on days 3 and 4 (Figure 2A, p < 0.05), and the AUC of active avoidance (Figure 2B, p < 0.01 in QFY high-dose group) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05 in QFY low-dose group) during the test period. This data indicates that the ability to perform an active avoidance response was impaired in 5xFAD mice, whereas QFY administration improved it.
We used the Morris water maze to evaluate spatial learning and memory in mice. The results showed (Figure 2D–I) that the escape latency on the first day (Figure 2D, p < 0.05) and AUC of escape latency (Figure 2E, p < 0.01) during learning period, escape latency in testing period (Figure 2F, p < 0.05) were obviously increased in 5xFAD mice compared with WT mice, the number of platform crossings (Figure 2H, p < 0.05) was reduced significantly in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05) and during the testing period (Figure 2F, p < 0.01). The treatment of QFY significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05 in QFY low-dose and high-dose groups, p < 0.01 in QFY medium-dose group) and escape latency (Figure 2F, p < 0.01 in three QFY groups) during the testing period, and also prolonged the time in the target quadrant (Figure 2G, p < 0.05 in low-dose QFY group), increased the number of crossings (Figure 2H, p < 0.05 in low-dose QFY), evidently. These results indicate spatial learning and memory deficits in 5xFAD mice and that QFY treatment ameliorated these deficits.
Administration of QFY alleviates aging in 5xFAD mice
After QFY administration, gait, grip strength, and colony nesting tests were used to evaluate mouse aging. The results (Figure 3A) showed that, compared with WT mice, run duration, run maximum variation, and the step sequence regularity index decreased significantly in 5xFAD mice (p < 0.05). Run average speed (Figure 3A, p < 0.05), right forelimb (RF) stand index (Figure 3A, p < 0.01), left hindlimb (LH) stand index (Figure 3A, p < 0.05), RF max contact (Figure 3A, p < 0.01), right hindlimb (RH) swing speed (Figure 3A, p < 0.05), LH swing speed (Figure 3A, p < 0.01) and duty cycle (FIGURE 3A, p < 0.05) in 5xFAD was significant increased. The treatment of donepezil and memantine increased RH, stand index left forelimb (LF) stand index (Figure 3A, p < 0.05) and decreased LH duty cycle (Figure 3A, p < 0.01), also reduced RH initial dual stance (Figure 3A, p < 0.05) and LH terminal dual stance (Figure 3A, p < 0.01) of 5xFAD mice. The administration of QFY reduced LH duty cycle (Figure 3A, p < 0.05 in QFY low- and p < 0.01 in medium-dose group), RH initial dual stance (Figure 3A, p < 0.05 in QFY low-dose and high-dose group, p < 0.01 in QFY medium-dose group) and LH terminal dual stance (Figure 3A, p < 0.05 in QFY low-dose group, p < 0.01, in QFY medium- and high-dose group), also increased the run duration (Figure 3A, p < 0.05 in QFY low-and medium-dose group), run maximum variation (Figure 3A, p < 0.05 in QFY low- and medium-dose group), step sequence regularity index (Figure 3A, p < 0.01 in QFY low- and medium-dose group), LF stand index (Figure 3A, p < 0.05 in QFY low-dose group) and LH stand index (Figure 3A, p < 0.05 in QFY low-dose group) of 5xFAD mice. These results indicate that 5xFAD mice exhibited an abnormal gait, which QFY treatment restored.
After QFY administration, a grip-strength test was conducted to assess forelimb strength. The experimental data (Figure 3B) show that the forelimb strength of the 5xFAD mice was significantly weaker than that of WT mice (p < 0.01). The administration of donepezil and memantine (Figure 3B, p < 0.01), QFY (Figure 3B, p < 0.01, in QFY low-dose and high-dose groups) significantly increased the grip strength of the 5xFAD mice. These studies suggest that forelimb strength in 5xFAD mice has been enhanced by QFY treatment.
The results of colony nesting test showed (Figure 3C–G) that the nesting score of the 5xFAD mice were significantly lower than the WT mice at 6 h (Figure 3C, p < 0.05), 12 h and 24 h after the start of colony nesting (Figure 3DE, p < 0.01), and the untorn tissue weight was significantly higher of 5xFAD mice (Figure 3F, p < 0.01). Administration with donepezil and memantine just decreases the untorn tissue weight (Figure 3F, p < 0.01). The treatment with QFY increased nesting scores at 12 h (Figure 3D; QFY p < 0.05 in the QFY medium-dose group) and 24 h (Figure 3E; QFY p < 0.05 in the QFY low- and medium-dose groups). Moreover, the untorn tissue weight was significantly lower in the QFY low- and medium-dose groups (Figure 3F, p < 0.01) and in the QFY high-dose group (Figure 3F, p < 0.05). These results indicated that QFY treatment enhanced daily activity in 5xFAD mice.
Treatment of QFY reduces the synaptic structure damage in the cerebral cortex of 5xFAD mice
After QFY treatment, the cerebral cortex of mice was collected to measure the protein levels of GAP-43, PSD-95, and SYN by ELISA. The results (Figure 4A–C) showed that the contents of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) in the cerebral cortex of the 5xFAD mice were significantly lower than those in WT mice. The protein content of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) significantly increased after the treatment of QFY. The results of Golgi-Cox staining (Figure 4D) showed that the length of dendrites in the cerebral cortex of the 5xFAD mice was shorter (Figure 4G, p < 0.05) than that of WT mice. The treatment with QFY tended to increase the length, number, and density of dendritic spines.
Treatment of QFY reduced Aβ deposition and cellular senescence in the brains of 5xFAD mice
Aβ deposition and cellular senescence play important roles in AD pathogenesis. We used a combination of SA-β-Gal staining and Aβ immunohistochemistry to assess co-localization between SA-β-Gal and Aβ plaques. The result showed there was a large amount of SA-β-Gal aggregation and Aβ plaque deposition in the cerebral cortex of 5xFAD mice (Figure 5A), while only a few SA-β-Gal aggregations and Aβ plaque depositions were found after QFY treatment (Figure 5A). In addition, there was co-localization of SA-β-Gal and Aβ plaque.
Immunofluorescence assays revealed that 5xFAD mice brains were heavily laden with both Aβ plaques and p21-positive cells (Figure 5B,C). Administration of QFY significantly curtailed cortical Aβ plaque and attenuated p21 expression in these animals (Figure 5B,C). The results of ELISA showed that compared with WT mice, the content of Aβ1-42 and the ratio of Aβ1-42/ AΒ1-40 was significantly increased in the hippocampus of 5xFAD mice (Figure 5D,F, p < 0.01), while the treatment of QFY reduced them obviously (Figure 5D, p < 0.01; Figure 5F, p < 0.05, respectively).
Senescent cells typically secrete large amounts of SASP factors. The results of Luminex analysis showed the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.01), IL-17A (Figure 5J, p < 0.05), CCL3 (Figure 5K, p < 0.01), CCL4 (Figure 5L, p < 0.01), CCL5 (Figure 5M, p < 0.01) and IFN-γ (Figure 5N, p < 0.01) were significantly increased in cortex of 5xFAD mice. QFY treatment decreased the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.05), IL-6 (Figure 5I, p < 0.05), IL-17A (Figure 5J, p < 0.05), and IFN-γ (Figure 5N, p < 0.01) in the cortex significantly.
These data indicate that cellular senescence appeared in the brain of 5xFAD mice, while the treatment of QFY reduced cellular senescence in 5xFAD mice.
Effects of QFY ameliorating cognitive impairment and reducing the aging of brain cells in 5xFAD mice correlated with synaptic damage
Principal component analysis (PCA) was performed to assess the overall SASP expression profiles (IL‑1α, IL‑1β, IL‑6, IL‑17A, CCL3, CCL4, CCL5, and IFN‑γ) among WT, 5xFAD, and QFY‑treated groups (Figure 6A). The first two principal components accounted for 44.11% and 23.46% of the total variance, respectively. As shown in the PCA score plot (Figure 6A), the WT group was clearly separated from the 5xFAD group. Notably, the QFY‑treated group showed an intermediate position, clustering more closely with the WT group than with the 5xFAD group, suggesting partial normalization of the SASP profile after QFY treatment. Statistical analysis of PC1 scores (Figure 6B) revealed that the 5xFAD group exhibited significantly higher PC1 values than the WT group. PC2 scores (Figure 6C) also showed significant differences between the 5xFAD and WT groups. Loading plot analysis (Figure 6D) indicated that IL‑1α, IL‑1β, and IFN‑γ were the major contributors to PC1, whereas IL‑6 and CCL3 contributed more substantially to PC2.
We performed Pearson correlation analyses between IL-1α, IL-1β, and IFN-γ and the contents of PSD-95, GAP-43, and SYN in the cortex, as well as the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 in the hippocampus, and developed heatmaps to visualize the interplay between synaptic-associated protein and SASP function. IL-1α, IL-1β, and IFN-γ levels positively correlated with the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 (Figure 6E, p < 0.05), and negatively correlated with the content of SYN protein. The levels of IL-1α and IFN-γ were negatively correlated with the content of GAP-43 protein, and IL-1β was negatively correlated with PSD-95 protein (Figure 6E, p < 0.05). These data suggest that IL-1α, IL-1β, and IFN-γ are major contributors to synaptic dysfunction.
Data Availability:
All raw data supporting the findings of this study have been deposited in Figshare and are accessible via the private reviewer link: https://doi.org/10.6084/m9.figshare.33208029.
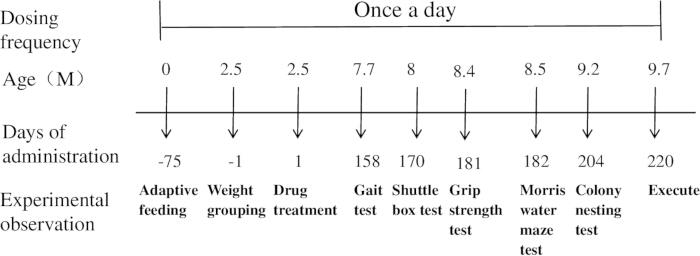
Figure 1: Schematic diagram of the experimental procedure. Please click here to view a larger version of this figure.
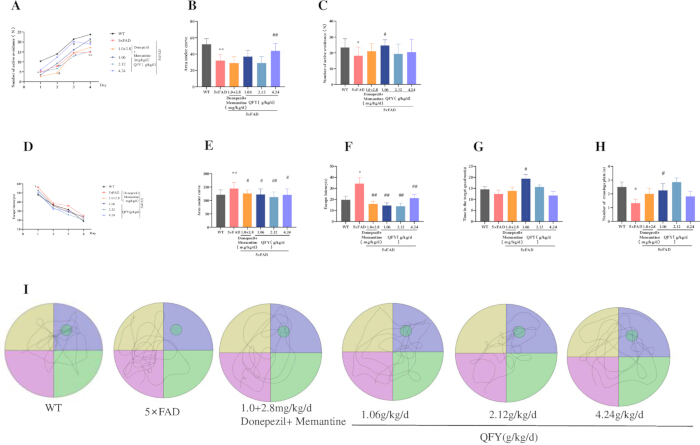
Figure 2: QFY administration improves learning and memory performance in 5xFAD mice. (A–C) Shuttle box test: (A) Number of active avoidance responses during the learning period. (B) Area under the curve (AUC) for active avoidance responses during the learning period. (C) Number of active avoidance responses during the test period. (D–I) Morris water maze test: (D) Escape latency during the learning period. (E) AUC for escape latency during the learning period. (F) Escape latency during the test period. (G) Time spent in the target quadrant. (H) Number of platform crossings. (I) Movement trajectories during the test period. Mean ± SD, n = 11–20 per group, with exact n indicated in each bar. * = p < 0.05, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD; One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
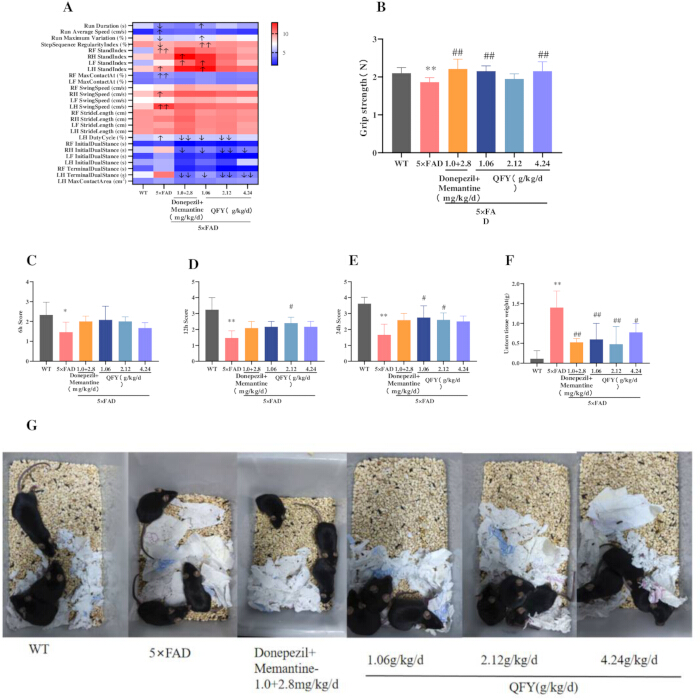
Figure 3: Effects of QFY administration on aging-associated functional measures in 5xFAD mice. (A) Gait heat map. The color scale is based on row‑wise Z‑score normalization, where red indicates values above the group mean, blue indicates values below the group mean, and white represents the mean level. (B) Grip strength test. (C–G) Colony nesting test: (C) Nesting score 6 h, (D) Nesting score at 12 h. (E) Nesting score at 24 h. (F) Untorn tissue weight. (G) Representative images of nests at 24 h. Mean ± SD, n = 3 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5x FAD, One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
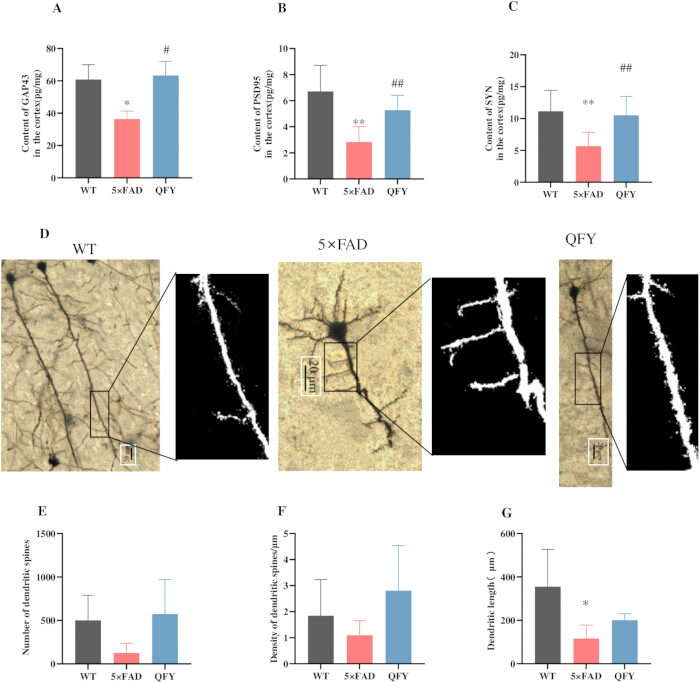
Figure 4: QFY attenuates synaptic structural alterations in the cerebral cortex of 5xFAD mice. (A) Content of GAP-43 in the cortex. (B) Content of PSD-95 in the cortex. (C) Content of SYN in the cortex. (D) Golgi-Cox staining. (E) Number of dendritic spines. (F) Density of dendritic spines. (G) Dendritic length. Mean ± SD, n = 3–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD, Student`s t-test. Please click here to view a larger version of this figure.
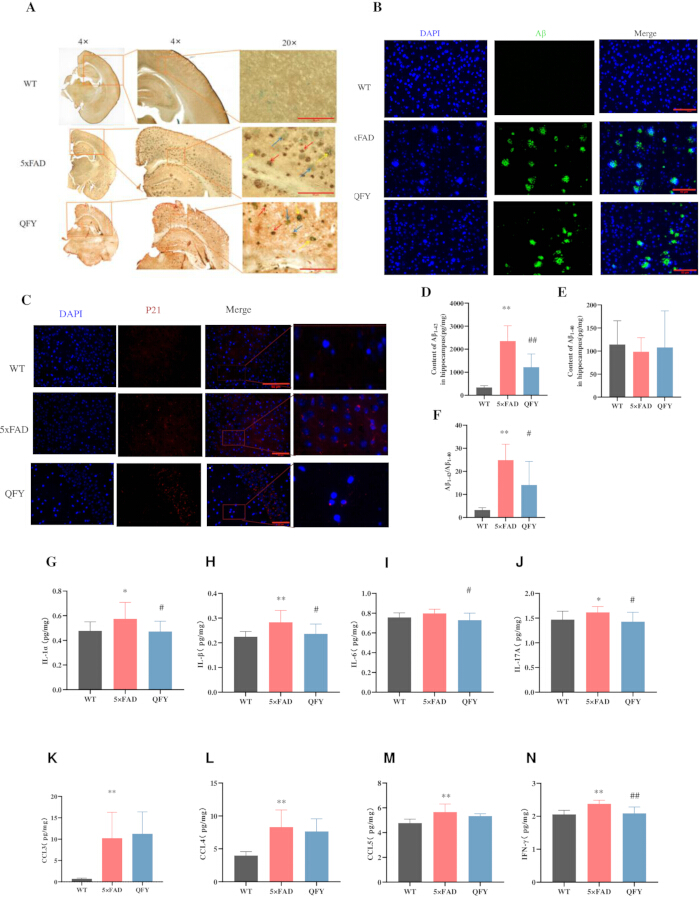
Figure 5: QFY reduced Aβ deposition and cell senescence in the brains of 5xFAD mice. (A) Combined SA-β-Gal staining and Aβ immunohistochemistry, SA-β-Gal (green, blue arrow), Aβ (brown, red arrow), SA-β-Gal + Aβ (yellow arrow), n = 3, Scale bar = 10 µm, 20x objective. (B) Immunofluorescence images showing Aβ in the cerebral cortex after treatment of QFY, n = 3, Scale bar = 50 µm, 40x objective. (C) Immunofluorescence images showing p21in the cerebral cortex after treatment of QFY. n = 1, Scale bar = 50 µm, 40x objective. (D–F) ELISA. (D) Content of Aβ1-42 in the hippocampus. (E) Content of Aβ1-40 in the hippocampus. (F) Aβ1-42/ Aβ1-40. (G–N) Luminex cytokine analysis. (G) Content of IL-1α in the cortex. (H) Content of IL-1β in the cortex. (I) Content of IL-6 in the cortex. (J) Content of IL-17A in the cortex. (K) Content of CCL3 in the cortex. (L) Content of CCL4 in the cortex. (M) Content of CCL5 in the cortex. (N) Content of IFN-γ in the cortex. Mean ± SD, n = 8–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student’s t-test; # = p < 0.05 ## = p < 0.01, vs 5xFAD, Student’s t-test. Please click here to view a larger version of this figure.
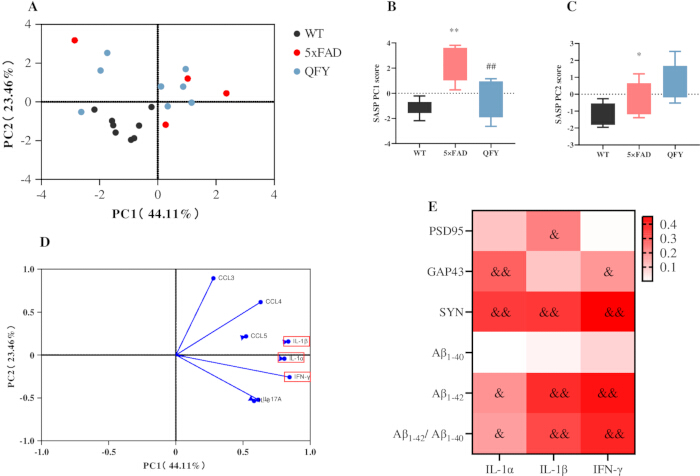
Figure 6: Principal component and correlation analyses of SASP factors, synaptic proteins, and Aβ levels in 5xFAD mice following QFY treatment. (A–D) Principal component analysis (PCA) of SASP factors. (A) PCA score plot. (B) PC1 scores. (C) PC2 scores. (D) PCA loading plot. (E) Heatmap generated from the correlation analysis between the SASP and PSD-95, GAP-43, SYN, Aβ1-40, Aβ1-42, and the ratio of Aβ1-42/Aβ1-40. Colors closer to red indicate higher R-values, while colors closer to white indicate lower R-values. Mean ± SD; n = 8 per group. * = p < 0.05, ** = p < 0.01,vs WT; ## = p < 0.01, vs 5xFAD, & = p < 0.05, && = p < 0.01, indicates a significant correlation. Pearson correlation analysis was used to assess associations between variables. Please click here to view a larger version of this figure.
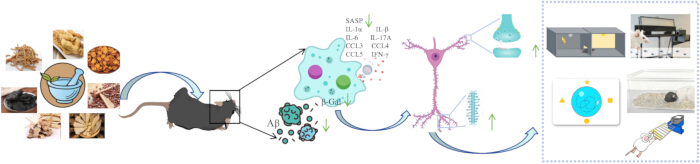
Figure 7: Proposed model of the effects of QFY on age-related cognitive decline and cellular senescence-associated phenotypes in 5xFAD mice. Please click here to view a larger version of this figure.
Tartışma
Nöral sinaptik plastisite, bilişsel işlevde kilit bir rol oynar. AD hastalarının beyinlerinde, Aβ birikintileri farklı bölgelere yayılır; bu durum doğrudan sinaptik yapısal hasara, eksitatör sinaps kaybına ve bilişsel gerilemeye neden olur28. GAP-43 (presinaptik bir membran proteini)29, PSD-95 (postsinaptik membranda yer alan bir iskele proteini)30 ve SYN (sinaptik veziküllerle ilişkili bir fosfoprotein)31, sinaptik yapı plastisitesinde ve AD patogenezinde önemli bir rol oynar32. Mevcut çalışma, QFY tedavisinin 5xFAD farelerin beyinlerinde dendritik diken sayısını ve GAP-43, PSD-95 ile SYN protein seviyelerini artırarak öğrenme ve hafızayı iyileştirdiğini, Aβ plak yükünü azalttığını ve sinaptik yapıyı restore ettiğini saptamıştır.
Yaşlanma, AD gelişimi için kritik bir risk faktörüdür ve Aβ üretimini teşvik eder. Yaşlanmanın karakteristik özellikleri arasında kas kuvvetinde azalma, yürüyüş dengesizliği ve temel günlük yaşam aktivitelerinin bozulması yer alır33,34. SA-β-Gal ile karakterize edilen hücresel senesansın yaşlanma ve AD gibi yaşa bağlı hastalıkların başlangıcıyla ilişkili olduğu bildirilmiştir11,35. Hücresel senesansın seçici olarak ortadan kaldırılması sağlıklı yaşam süresini uzatır ve yaşa bağlı hastalıkları geciktirir36. Senesent hücrelerin genetik veya farmakolojik yaklaşımlarla temizlenmesi, AD model farelerde Aβ birikimini azaltmış ve öğrenme ile hafıza fonksiyonlarını iyileştirmiştir37. Dasatinib ve Quercetin (D+Q) ile yapılan kombinasyon tedavisi; oligodendrosit progenitor hücre senesansını azaltır, nöroinflamasyonu hafifletir, Aβ plağını ve SA-β-Gal aktivitesini düşürür, APP/PS1 farelerde Aβ birikimini ve bilişsel bozulmayı önler37. Memantin tedavisi, SAMP8 farelerinin beyinlerinde SA-β-Gal aktivitesini önemli ölçüde azaltmış ve mekânsal öğrenme ile hafızayı iyileştirmiştir; aynı etki memantin ve donepezil kombinasyonunda da gözlemlenmiştir38. Mevcut çalışma, QFY tedavisinin, özellikle 5xFAD farelerinin beyinlerindeki SA-β-Gal boyamasının gösterdiği üzere hücresel senesansı hafifleterek yürüyüşü iyileştirdiğini, ön kol kaslarını güçlendirdiğini ve temel günlük yaşam aktivitelerindeki yetenekleri artırdığını bulmuştur.
AD hastaları ve hayvan modelleri, yaşlanmış astrositler, mikroglia, endotel hücreleri ve nöronlar sergilemektedir39,40. Kemokinleri ve enflamatuar sitokinleri içeren SASP salgılaması, hücresel yaşlanmanın ayırt edici bir özelliğidir; aşırı SASP salgılanması, doku hasarı ve hücresel yaşlanma ile sonuçlanan kronik enflamasyona yol açabilir41. IL-1α, IL-1β, IL-6, IL-8, IFN-γ, CCL2, CCL3, CCL4, CCL5, CXCL1 ve benzerlerini içeren SASP'nin sürekli salgılanması; kronik enflamasyonu, normal hücrelerin parakrin yaşlanmasını, hücresel metabolizma ve epigenetik düzenlemedeki değişiklikleri ve sürekli Aβ üretimini teşvik eder42,43,44,45. IL-1α, IL-1β, IL-6, IL-17A ve IFN-γ seviyeleri, AD hastalarının ve AD modellerinin beyinlerinde önemli ölçüde artış göstermektedir46. Çalışmalar, D+Q'nun IL-1α ve IFN-γ dahil olmak üzere enflamatuar faktörlerin salgılanmasını inhibe edebildiğini ve APP/PS1 farelerinde Aβ plağı ile SA-β-Gal aktivitesini azalttığını göstermiştir37. Çalışma, QFY'nin IL-1α, IL-1β, IL-6, IL-17A ve IFN-γ dahil olmak üzere çeşitli SASP faktörlerinin ekspresyonunu azalttığını, böylece yaşlanma ile ilişkili enflamatuar fenotipi hafiflettiğini bulmuştur.
p21, siklin bağımlı kinaz inhibitörlerinin CIP/KIP ailesine aittir ve siklin-CDK2/4 kompleksleri üzerinde proksimal bir fren görevi görerek hücresel stres, DNA hasarı ve yaşlanma meydana geldiğinde G1/G2 duraklamasını uygular. p21 bolluğundaki sürekli bir artış, yaygın olarak stabil bir senesans programına giriş olarak yorumlanmaktadır47,48. Yeni ortaya çıkan veriler, 5xFAD farelerinin alışılmadık derecede yüksek bir serebral p21 yüküne sahip olduğunu ve bunun D+Q ortak tedavisi ile belirgin şekilde azaldığını ortaya koymaktadır49. Bununla uyumlu olarak, mevcut çalışma, QFY uygulamasının bu hayvanlarda kortikal Aβ plaklarını önemli ölçüde azalttığını ve p21 ekspresyonunu hafiflettiğini bulmuştur.
Kolektif olarak bu bulgular, QFY tedavisinin 5xFAD farelerinde yaşa bağlı bilişsel gerileme ve hücresel senesans fenotiplerindeki iyileşmelerin yanı sıra hafifletilmiş sinaptik yapısal hasarla ilişkili olduğunu göstermektedir (Şekil 7).
Bu çalışmanın bazı kısıtlamaları kabul edilmelidir. İlk olarak, yalnızca erkek 5xFAD fareler kullanılmıştır ve gözlemlenen etkilerin cinsiyete bağlı olup olmadığı henüz belirlenmemiştir. İkinci olarak, mevcut veriler azalmış yaşlanma ile ilgili fenotipler ile bilişsel iyileşme arasında güçlü ilişkiler olduğunu gösterse de, nedenselliği belirlemek için doğrudan mekanistik müdahale deneyleri yürütülmemiştir. Üçüncü olarak, bulguların insan AD üzerindeki translasyonel geçerliliği, tür farklılıkları ve klinik farmakokinetik verilerin eksikliği nedeniyle sınırlıdır. Bulguları genişletmek için dişi hayvanların, yaşlanmaya özgü müdahalelerin ve iyi tasarlanmış klinik çalışmaların dahil edildiği gelecek çalışmalar gereklidir.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu çalışma, Çin Ulusal Doğal Bilim Vakfı (82205078, 82374062), Shandong Eyaleti Doğal Bilim Vakfı (ZR2026MS1293, ZR2021QH157), Shandong Eyaleti Geleneksel Çin Tıbbı Bilim ve Teknoloji Projesi (M20251730), Çin Xizang Özerk Bölgesi Bilim ve Teknoloji Projeleri (XZ202601ZY0167) ve Shandong Eyaleti Teknoloji İnovasyon Rehberlik Programı (Merkezi Hükümet Rehberliğindeki Yerel Bilim ve Teknoloji Geliştirme Fonu) (YDZX2023137) tarafından, 'Sınıf 1 Yeni Geleneksel Çin Tıbbı olarak Tongli Enterik Kaplı Kapsüllerin Geliştirilmesi ve Endüstriyelleştirme Araştırması' başlıklı proje kapsamında desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| İlaçlar | |||
| Donepezil | Shanghai Yuanye Technology | lot.J15HB188725 | |
| Memantin | Shanghai Yuanye Technology | lot. J21HB189391 | |
| Qi-fu-yin | Lunan Pharmaceutical Houpu Araştırma ve Geliştirme Merkezi | lot. 2209001 | |
| Davranışsal testler | |||
| CatWalk XT | Noldus | CatWalkXT 10.0 yazılımı | |
| El kavrama kuvveti ölçer | Bileadbiosci | BLD-ZL-20 | |
| Morris su labirenti | Shanghai Xinruan Information Technology Co., Ltd | 120 cm | |
| Mekik kutusu | Shanghai Xinruan Information Technology Co., Ltd | XR-XC404 | |
| Antikorlar | |||
| Anti-Aβ1-42 antikor | Abcam | Katalog No ab201061 | |
| Anti-p21/CIP1/CDKN1A antikoru | Novus Biologicals | Kat# NBP3-15661 | |
| Analiz Kitleri | |||
| Aβ1-40 ELISA kiti | Thermo Fisher Scientific | Katalog No KHB3482 | |
| Aβ1-42 ELISA kiti | Thermo Fisher Scientific | Kat# KHB3442 | |
| Bio-Plex Pro Mouse Cytokine 23-plex Analiz kiti | R&D Sistemleri | Kat# LXLBM23-1 | |
| GAP-43 ELISA kiti | Jiangsu Enzim İmmünassay Endüstrisi | Kat# MM-47506M1 | |
| Golgi-Cox boyama kiti | BeiJing Biolead Biology Sci & Tech Co | Katalog No PK401 | |
| PSD-95 ELISA kiti | Jiangsu Enzim İmmünosay Endüstrisi | Kat# MM-45953M1 | |
| Hücresel yaşlanma β-Galaktosidaz Boyama kiti | Beyotime | Kat# C0602 | |
| Sinaptofizin (SYN) ELISA kiti | Jiangsu Enzim İmmünanaliz Endüstrisi | Katalog No MM-46504M1 | |
| Kimyasallar & Reaktifler | |||
| Tavşan ve fare IgG karşıtı (sekonder antikor) | Başlangıç | Kat# S0C1001 | |
| DAB kromojeni | Başlangıç | Katalog No S0C1001 | |
| Yazılım | |||
| CatWalk XT | Noldus Bilgi Teknolojileri | Sürüm 10.0 | |
| ImageJ | Ulusal Sağlık Enstitüleri (NIH) | Versiyon 1.53 |
Kaynaklar
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.