Bu protokol, ağır akut solunum sendromu koronavirüs 2 ve lipopolisakkaritin kombine intranazal uygulamasıyla indüklenen, koronavirüs hastalığı 2019 ile ilişkili akciğer hasarının bir fare modelini tanımlamaktadır. Model; pulmoner inflamatuar yanıtların, bozulmuş tip I interferon yanıtlarının ve potansiyel terapötik müdahalelerin araştırılmasına olanak tanır.
Yöntem makalesi
Şiddetli Akut Solunum Sendromu Koronavirüs 2 ve Lipopolisakkarit ile İndüklenen Koronavirüs Hastalığı 2019 İlişkili Akciğer Hasarının Fare Modeli
45 görüntülenme
⸱
11 Eylül 2026
* These authors contributed equally
Bu makalede
Özet
Özet
Aşılama ve antiviral tedavilerin yaygın uygulamasına rağmen, SARS-CoV-2 enfeksiyonu hassas popülasyonlar arasında önemli oranda morbidite ve mortaliteye neden olmaya devam etmekte; bu durum COVID-19'un patogenezini araştırmak, ilaç etki mekanizmalarını aydınlatmak ve potansiyel terapötik stratejileri değerlendirmek için güvenilir deneysel modellere duyulan acil ihtiyacı vurgulamaktadır. SARS-CoV-2 enfeksiyonu, aşırı inflamatuar yanıtlar ve bozulmuş tip I interferon (IFN-I) aracılı antiviral immünite ile karakterize olan şiddetli akciğer hasarına yol açabilir; ancak mevcut hayvan modelleri, COVID-19 ile ilişkili düzensiz immün-inflamatuar yanıtları yeniden oluşturma konusunda sınırlı kalmaktadır. COVID-19'un temel immünopatolojik özelliklerini taklit etmek amacıyla SARS-CoV-2 ve LPS ile indüklenen bir COVID-19 ilişkili akciğer hasarı fare modeli geliştirilmiştir. Bu model, akciğer dokusunda inflamatuar hücre infiltrasyonu, alveolar yapısal yıkım ve pro-inflamatuar sitokinlerin artmış ekspresyonu ile birlikte bozulmuş IFN-I yanıtlarını içeren belirgin patolojik özellikler oluşturur. Bu çalışma, SARS-CoV-2 ve LPS ile indüklenen akciğer hasarı fare modelini kurmak için kullanılan prosedürlerin ayrıntılı bir açıklamasını sunmakta ve modeli akciğer histopatolojik değişiklikleri, viral yük, inflamatuar sitokinler ve IFN-I seviyelerinin analizleri yoluyla sistematik olarak karakterize etmektedir. Bu model, COVID-19 ile ilişkili akciğer hasarının altında yatan immün-inflamatuar mekanizmaları ve akciğer dokusu onarımında yer alan süreçleri araştırmak için deneysel bir platform sunarken, aynı zamanda immün-inflamatuar düzensizliği hafifletmeyi ve pulmoner fonksiyonların iyileşmesini sağlamayı amaçlayan terapötik stratejilerin değerlendirilmesi için bir temel oluşturmaktadır.
Giriş
2019'un sonlarında ortaya çıktığından beri SARS-CoV-2, küresel bir halk sağlığı sorununa yol açmış olup, devam eden viral evrim mevcut aşılar ve terapötik stratejiler için zorluklar oluşturmaya devam etmektedir1,2,3. Bu nedenle, hastalık mekanizmalarını aydınlatmak ve terapötik stratejileri geliştirmek için COVID-19 ile ilişkili akciğer hasarının daha derinlemesine incelenmesi esastır.
SARS-CoV-2 enfeksiyonu ağır akciğer hasarına yol açabilir ve hatta akut respiratuvar distres sendromu (ARDS) ile çoklu organ disfonksiyon sendromuna ilerleyebilir4,5. Artan kanıtlar, COVID-19 ile ilişkili akciğer hasarının patogenezinin oldukça karmaşık olduğunu ve temel bir özelliğinin immün ve inflamatuar yanıtların düzensizleşmesi olduğunu göstermektedir6,7,8,9. Bir yandan, SARS-CoV-2 enfeksiyonu aşırı bir inflamatuar yanıtı tetikleyerek interlökin-6 (IL-6), interlökin-1β (IL-1β) ve tümör nekroz faktör-α (TNF-α) gibi pro-inflamatuar sitokinlerin masif salınımına yol açabilir ve böylece akciğer hasarının ve hastalık progresyonunun ana itici gücü olduğu düşünülen "sitokin fırtınası" olarak adlandırılan durumu başlatabilir10,1. Diğer yandan, enfeksiyonun erken evresinde SARS-CoV-2, birden fazla mekanizma aracılığıyla konakçı IFN-I yanıtını baskılayarak IFN-I aracılı antiviral immünitenin bozulmasına neden olabilir12,13,14. Buna bağlı olarak, yükselmiş pro-inflamatuar sitokin seviyeleriyle birlikte seyreden gecikmiş bir interferon yanıtı, COVID-19'un karakteristik bir özelliği olarak kabul edilmektedir6,15.
Günümüzde mevcut olan COVID-19 hayvan modelleri büyük ölçüde hACE2 transgenik farelere, fareye adapte edilmiş viral suşlara veya gelincikler ve insan dışı primatlar gibi diğer türlere dayanmaktadır16,17. Ancak, farelerdeki konvansiyonel SARS-CoV-2 enfeksiyon modelleri, COVID-19'un hiperinflamatuar özelliklerini tam olarak yeniden oluşturmakta genellikle yetersiz kalmaktadır18,19,20. Bir TLR4 agonisti olan LPS, güçlü inflamatuar yanıtlar indükler ve akut akciğer hasarı modellerinde yaygın olarak kullanılır21. Bu nedenle, bu çalışmada tanımlanan SARS-CoV-2 ve LPS indüklemeli model, COVID-19 ile ilişkili akciğer hasarına, özellikle de aşırı inflamatuar aktivasyonun ve bozulmuş antiviral immün yanıtların altında yatan mekanizmalara odaklanan araştırmalar için tasarlanmıştır. Sadece SARS-CoV-2 kullanılan modellerle karşılaştırıldığında bu yaklaşım, viral enfeksiyon bağlamını korurken immün-inflamatuar özellikleri ön plana çıkarmaktadır. Bu model, viral transmisyonu veya SARS-CoV-2 enfeksiyonunun tam doğal seyrini modellemekten ziyade, immün-inflamatuar mekanizmaları incelemek için önemli bir potansiyele sahiptir.
Bu protokol, SARS-CoV-2 ve LPS ile indüklenen COVID-19 ile ilişkili akciğer hasarının fare modelinin prosedürsel kurulumunu özetlemektedir. Mevcut modellerin COVID-19 ile ilişkili immün-inflamatuar disregülasyonu yeniden üretmedeki sınırlılıkları göz önüne alındığında, bu yaklaşım hastalık mekanizmalarını incelemek ve potansiyel terapötik stratejileri değerlendirmek için pratik bir platform sunmaktadır. Model; akciğer histopatolojisi, viral yük, inflamatuar sitokinler ve IFN-I yanıtları aracılığıyla sistematik olarak değerlendirilmiştir.
Protokol
Bu çalışma, SARS-CoV-2 ve LPS'nin intranazal instilasyonu yoluyla COVID-19 ile ilişkili akciğer hasarının bir fare modelini oluşturarak, transgenik fare modellerine karşı stabil ve maliyet etkin bir alternatif sunmuştur. Deneysel protokol, Sichuan Hastalık Kontrol ve Önleme Merkezi tarafından onaylanmış ve hayvan etiği onayı almıştır [Sichuan CDC (Hayvan Etiği) Onay No. 005 (2025)]. Tüm prosedürler, ilgili kılavuzlara ve biyogüvenlik düzenlemelerine sıkı bir şekilde uygun olarak yürütülmüştür.
Temel reaktifler ve ekipmanlar hakkında detaylı bilgi Materyal Tablosu'nda verilmiştir.
1. Çalışma protokolü tasarımı
- BALB/c farelerini rastgele kontrol grubu veya model grubuna ayırın.
- 0. günde model grubundaki farelere intranazal olarak SARS-CoV-2 uygulayın.
- 2. günde model grubundaki farelere intranazal olarak LPS uygulayın.
- Kontrol farelerine karşılık gelen zaman noktalarında intranazal olarak eşit hacimde normal salin uygulayın.
- SARS-CoV-2 enfeksiyonundan sonraki 3. günde tüm fareleri ötanize edin ve model doğrulaması için akciğer dokularını toplayın.
NOT: Deneysel iş akışı Şekil 1A'da gösterilmiştir.
2. Hazırlık
- Hayvan hazırlığı
- 6–8 aylık ve yaklaşık 25–30 g ağırlığında, spesifik patojenden arındırılmış (SPF) dişi BALB/c fareler kullanın.
- Fareleri, rastgele sayı tablosu kullanarak grup başına dört hayvan olacak şekilde kontrol grubu veya model grubuna rastgele atayın.
- Fareleri, yiyecek ve suya serbest erişimin olduğu standart laboratuvar koşullarında barındırın.
NOT: Önceki çalışmalar, yaşlı farelerin intranazal SARS-CoV-2 enfeksiyonuna genç farelerden daha duyarlı olduğunu göstermiştir18,2. Bu nedenle, SARS-CoV-2 ile ilişkili akciğer hasarı modelinin oluşturulmasını kolaylaştırmak için bu çalışmada yaşlı BALB/c fareler seçilmiştir. - Her fareye, fare başına 4.5 x 10⁵ TCID₅₀'lik nihai enfeksiyöz doza karşılık gelen 10 µL viral süspansiyonu intranazal olarak inoküle edin.
NOT: SARS-CoV-2, Sichuan Hastalık Kontrol ve Önleme Merkezi tarafından sağlanmıştır. Bu çalışmada kullanılan suş, 4.5 x 10⁶ TCID₅₀/mL viral stok titrine sahip SARS-CoV-2 Omicron varyantıdır.
UYARI: SARS-CoV-2 yüksek derecede patojenik bir mikroorganizma olduğundan, virüsle ilgili tüm prosedürleri Hayvan Biyogüvenlik Seviyesi 3 (ABSL-3) tesisinde gerçekleştirin. Farklı viral varyantlar veya hayvan modelleri kullanırken enfeksiyöz dozu ön deneylere göre optimize edin.
- Çalışma stokunun hazırlanması
- LPS stok çözeltisinin hazırlanması: 3 mg LPS tozunu tartın ve 1 mL normal salin içinde çözün. 3 mg/mL konsantrasyonunda bir stok çözelti elde etmek için tamamen çözünene kadar nazikçe karıştırın veya sürekli vorteksleyin. Uygulama öncesinde, stok çözeltiyi farelerin vücut ağırlığına göre istenen çalışma konsantrasyonuna normal salin ile daha fazla seyreltin.
- Anestezik çözeltinin hazırlanması: Sonraki kullanım için gerekli kütle-hacim oranında bir çözelti hazırlamak amacıyla, tozu Zoletil paketinde sağlanan steril enjeksiyonluk su ile yeniden yapılandırın.
- Viral çalışma çözeltisinin hazırlanması: Kullanım öncesinde 1 mL SARS-CoV-2 viral süspansiyonunu bir biyogüvenlik kabininde buz üzerinde yavaşça çözdürün.
NOT: Tüm çalışma çözeltilerini hazırlarken ve kullanırken ilgili üretici talimatlarına uyun.
3. Farelerde intranazal uygulama
- Uygulama öncesinde her bir fareyi tartın ve vücut ağırlığını kaydedin.
- Her farenin vücut ağırlığına göre Zoletil ve LPS dozlarını hesaplayın.
- İlgili çalışma çözeltilerini hazırlayın ve sonraki uygulama için uygun bir şırınga kullanarak gerekli hacimleri çekin.
- Farelerin zapt edilmesi: Sol elin baş ve işaret parmağıyla, kulakların ve boynun arkasındaki deriyi tutarak fareyi ensesinden nazikçe yakalayın.
- Yüzük ve serçe parmağını sırtı ve kuyruğu sabitlemek için kullanarak hayvanı avuç içine yerleştirin. Fareyi, abdomen tamamen açıkta kalacak ve vücut stabilize olacak şekilde sırtüstü (supine) pozisyona getirin.
- Dezenfeksiyon: Abdominal enjeksiyon bölgesini steril bir pamuklu çubukla %75 etanol kullanarak dezenfekte edin.
- Anestezi: Zoletil (25mg/kg) içeren şırınganın iğnesini alt abdomen orta hattının yaklaşık 0.5 cm yan tarafına yerleştirin. İğneyi, cildi geçtikten sonra periton boşluğuna 45° açıyla yaklaşık 2–3 mm derinliğe kadar ilerletin. Kan olmadığından emin olmak için aspire edin ve ardından anestetik maddeyi yavaşça uygulayın.
NOT: Yeterli anesteziyi sağlamak ve mortaliteyi minimize etmek için anestetik dozu pilot deneylere göre optimize edin. Doku hasarını minimize etmek için tekrarlanan ponksiyondan kaçının. - Anestezinin doğrulanması: Dispne veya solunum sıkıntısı belirtileri olmaksızın, stabil ve düzenli solunumu gözlemleyerek anestezi durumunu doğrulayın.
- SARS-CoV-2'nin intranazal instilasyonu (0. gün): 10 µL SARS-CoV-2 viral süspansiyonunu (her bir burun deliğine 50 µL), sabit bir solunum döngüsü sırasında ve inspirasyon başlangıcında, bir mikropipet veya şırınga kullanarak dış burun deliklerine yavaşça ve damla damla uygulayın.
- Homojen inhalasyonu kolaylaştırmak için burun deliklerini dönüşümlü olarak kullanın. Kontrol farelerine aynı prosedürü kullanarak eşit hacimde normal salin uygulayın.
NOT: Çözeltiyi damla damla uygulayın; hedef hacme ulaşana kadar, bir sonraki damlayı uygulamadan önce her damlanın nazal kaviteye inhale edildiğinden emin olun. - Uygulama sonrası işlem: Çözeltinin alt solunum yollarına iletimini kolaylaştırmak için intranazal instilasyondan sonra fare başını yaklaşık 30–60 s boyunca hafifçe yükseltilmiş pozisyonda tutun. Anesteziden uyanma belirtileri gözlemlendiğinde fareleri kafeslerine geri koyun ve tam bilinç geri gelene kadar izleyin.
- Kayıt ve izleme: Uygulanan hacmi ve her farenin kimlik numarasını kaydedin. Deney süresi boyunca hayvanları sağkalım durumu ve genel fizyolojik kondisyon açısından sürekli olarak izleyin.
- LPS'nin intranazal instilasyonu (2. gün): SARS-CoV-2 enfeksiyonundan sonraki 2. günde farelere LPS uygulayın. LPS'nin (5 mg/kg) intranazal uygulamasını, SARS-CoV-2 uygulaması için kullanılan protokolle aynı şekilde gerçekleştirin. Kontrol farelerine aynı prosedürü kullanarak eşit hacimde normal salin uygulayın.
NOT: Bu adımda LPS ve normal salin, anestezi ve intranazal iletim dahil olmak üzere SARS-CoV-2 inokülasyonu ile aynı prosedür izlenerek uygulanmıştır.
4. Fare diseksiyonu ve akciğer dokusu toplama
- Doku toplama işlemi için SARS-CoV-2 enfeksiyonu sonrası 3. günde fareleri ötanize edin. Hayvanları önce anesteziye alın ve ardından servikal dislokasyon yoluyla sakrifiye edin. Kontrol farelerini de aynı prosedürle işleme tabi tutun.
NOT: Servikal dislokasyona ilişkin ayrıntılı prosedürler için Ek Dosya 1'e bakınız. - Ötanize edilen fareyi, abdominal ve torasik bölgeleri tamamen açık olacak şekilde bir diseksiyon tahtası üzerinde sırt üstü pozisyonda sabitleyin. Kontaminasyonu en aza indirmek için abdominal kürkünü %75 etanol ile nemlendirin.
- Steril makas kullanarak sternumu bilateral kostal kenarlar boyunca dikkatlice kesin ve torasik boşluğu kademeli olarak açın. Dokuları nazikçe geri çekmek için pens kullanın ve akciğer dokusuna verilen mekanik hasarı en aza indirerek akciğerleri çevreleyen torasik yapılardan aşama aşama diseke edin.
NOT: Kalbe, akciğerlere ve ana vasküler yapılara zarar vermemek için kesme işlemi sırasında makas uçlarının yönünü dikkatlice kontrol edin. - Eksize edilen akciğer dokularını derhal önceden soğutulmuş PBS veya normal saline içine yerleştirin ve kalıntı kan ile debrisleri uzaklaştırmak için 2–3 kez nazikçe durulayın. Dokuda yapısal hasarı önlemek için kompresyondan kaçınarak, yüzeydeki fazla sıvıyı hav bırakmayan filtre kağıdı ile dikkatlice kurulayın.
- İşlenen akciğer dokularını elektronik bir terazi kullanarak hızla tartın ve ölçümleri kaydedin.
- Sağ kaudal lobu eksize edin ve sonraki histopatolojik analiz için doku hacminin 10 katı hacmindeki %4 paraformaldehit içinde derhal fikse edin.
UYARI: Paraformaldehit toksiktir; kurumsal güvenlik kılavuzlarına uygun olarak kullanın. - Kalan akciğer dokularını toplayın, kriyotüpler halinde porsiyonlayın, sıvı azot içinde hızla dondurun ve koruma amacıyla −80 °C'de saklayın. Sağ kranial lobu, sağ orta lobu ve aksesuar lobu SARS-CoV-2 viral yükü ve pro-inflamatuar sitokin tespiti için ayırın ve sol akciğeri ELISA analizi için rezerve edin.
UYARI: Sıvı azot aşırı soğuktur; soğuk yanıkları veya donmayı önlemek için kullanım sırasında uygun kriyojenik eldivenler ve güvenlik gözlükleri takın. - Diseksiyonu tamamladıktan sonra tüm aletleri standart prosedürlere göre iyice temizleyin ve sterilize edin. Hayvan kadavralarını ve biyolojik atıkları, hayvan deneylerine ilişkin kurumsal ve mevzuat kılavuzlarına uygun olarak bertaraf edin.
5. Hematoksilen-Eozin (HE) boyama23
- Taze akciğer dokularını oda sıcaklığında 24 sa boyunca %4'lük paraformaldehit ile fikse edin.
NOT: Fiksasyon süresini dikkatle kontrol edin. Dokunun yetersiz korunmasına yol açabilecek eksik fiksasyondan ve aşırı protein çapraz bağlanmasına neden olup boyama kalitesini etkileyebilecek uzun süreli fiksasyondan kaçının. - Fikse edilmiş dokuları dereceli dehidrasyon, şeffaflaştırma ve parafin infiltrasyonu için otomatik doku işlemcisi kullanarak işleyin.
NOT: Otomatik doku işlemcisi protokolü Ek Dosya 2'de verilmiştir. - Parafinle infiltre edilmiş dokuları gömme kalıplarına yerleştirin. Erimiş parafin ekleyin ve dokuyu dikkatlice yönlendirin.
- Kalıpları katılaşma için soğuk plakaya aktarın. Tam sertleşme sağlandıktan sonra parafin bloklarını kalıplardan çıkarın.
- Parafin bloklarını mikrotoma monte edin ve kesim yüzeyini bıçağa paralel olacak şekilde ayarlayın. Yaklaşık 3–5 µm kalınlığında seri kesitler alın.
- Kesitleri, tam genleşmelerini sağlamak için hemen yaklaşık 45 °C'deki bir su banyosuna aktararak yüzdürün.
- Slaytın bir ucunu dikey olarak suya daldırarak kesitleri lam üzerine alın ve kesitlerin lam yüzeyine düzgün şekilde yapışmasına yardımcı olmak için pens kullanın.
- Doku yapışmasını artırmak için lamları yaklaşık 1 saat boyunca 65 °C'lik lam kurutucuya yerleştirin.
NOT: Kurutma süresini doku tipine, kesit kalınlığına ve ekipman koşullarına göre ayarlayın. Doku hasarını önlemek için aşırı ısıtmadan kaçının. - Kurutulmuş kesitlere otomatik boyayıcı kullanarak HE boyaması yapın.
NOT: Otomatik boyayıcı protokolü Ek Dosya 3'te verilmiştir. - Boyanmış kesitleri çıkarın ve havada kurutun. Bir damla nötr kapatma medyumu uygulayın ve lamları lamel ile kapatın. Kapatma medyumu katılaştıktan sonra kesitleri ışık mikroskobu altında inceleyin.
6. Akciğer dokusunda SARS-CoV-2 viral yükü ve pro-inflamatuar sitokinlerin ekspresyonu
- Akciğer dokusu homojenizasyonu
- 4-5 adet paslanmaz çelik boncuk (3 mm çapında) ekleyerek RNaz içermeyen homojenizasyon tüpleri hazırlayın ve 900 µL homojenizasyon ortamı olarak önceden soğutulmuş lizis tamponundan.
NOT: Lizis tamponu hacmini doku ağırlığına göre ayarlayın; bu oran tipik olarak doku başına yaklaşık 9 mL/1 g şeklindedir. - Yaklaşık 50 mg akciğer dokusunu tartın, dokuyu ince şekilde kıyın ve homojenizasyon tüpüne aktarın.
- Dokuyu bir doku parçalayıcı kullanarak homojenize edin (60 Hz, 60 s, döngüler arasında 10 s ara olacak şekilde 2–3 döngü boyunca).
NOT: Homojenizasyon parametrelerini kullanılan cihaza ve doku tipine göre optimize edin. - Tam parçalanmanın sağlandığından emin olmak için homojenizasyon sonrası örneği inceleyin. Görünür doku parçaları kalmışsa, homojen bir lizat elde edilene kadar homojenizasyon işlemini tekrarlayın.
- 4-5 adet paslanmaz çelik boncuk (3 mm çapında) ekleyerek RNaz içermeyen homojenizasyon tüpleri hazırlayın ve 900 µL homojenizasyon ortamı olarak önceden soğutulmuş lizis tamponundan.
- Akciğer dokusundan toplam RNA'nın kolon tabanlı ekstraksiyonu
NOT: Akciğer dokusundan toplam RNA'yı, üretici talimatlarına uygun olarak kolon tabanlı bir saflaştırma yöntemi kullanarak ekstrakte edin. Uygulanabilir olduğunda, alternatif RNA ekstraksiyon yöntemlerini ilgili ürün kılavuzlarına göre gerçekleştirin.- Homojenatı yeni bir 2 mL'lik RNazden arındırılmış mikrosantrifüj tüpüne aktarın. Ekleyin 100 µL gDNA Eliminatör çözeltisi. Tüp kapağını sıkıca kapatın ve 15–20 saniye boyunca kuvvetlice çalkalayın.
- Kapağı kısa süreliğine açın, ekleyin 180 µL kloroform ekleyin ve 15 saniye boyunca iyice vorteksleyin.
DİKKAT: Kloroform uçucu ve toksiktir; solunmasını ve ciltle temasını önlemek için iyi havalandırılan bir alanda veya kimyasal çeker ocak altında çalışın ve uygun kişisel koruyucu donanım kullanın. - Numuneyi oda sıcaklığında 2 dakika inkübe edin ve ardından 12.00 x g'de santrifüjleyin. g 15 dakika boyunca, ... sıcaklıkta/koşullarda 4 °C.
- Üstteki sulu fazı dikkatlice yeni bir tüpe aktarın. Eşit hacimde %70'lik etanol ekleyin ve vorteksleyerek iyice karıştırın.
NOT: RNA saflığını sağlamak için sulu fazı toplarken ara fazı ve organik tabakayı rahatsız etmekten kaçının. Santrifüj yapmadan, %70 etanol ekledikten hemen sonra bir sonraki adıma geçin. - Karışımı bir spin kolona aktarın ve 8.00 x g hızında santrifüjleyin. g 15 saniye boyunca. Akış sıvısını atın.
- Ekle 700 µL spin kolona yıkama tamponu ekleyin ve 8.0 x g hızda santrifüjleyin g 15 saniye boyunca. Akış sıvısını atın.
- Ekle 500 µL spin kolona yıkama tamponu ekleyin ve 8.0 x g'de santrifüjleyin g 15 saniye boyunca. Bu yıkama adımını bir kez tekrarlayın.
- Spin kolonunu yeni bir toplama tüpüne aktarın ve 12.0 x g'de santrifüjleyin g Kalıntı yıkama tamponunu uzaklaştırmak için 1 dk boyunca uygulayın.
- Spin kolonunu yeni bir 1,5 mL'lik RNaz içermeyen mikrocentrifüj tüpüne yerleştirin. Ekleyin 30 µL RNase içermeyen suyu doğrudan membranın merkezine ekleyin ve 8.00 x hızında santrifüjleyin g RNA'yı elüe etmek için 1 dakika boyunca bekleyin.
NOT: RNazden arındırılmış su hacmini 30– arasında ayarlayın.50 µL aşağı akış uygulamalarına göre belirleyin. Daha yüksek bir RNA konsantrasyonu gerektiğinde daha düşük bir elüsyon hacmi kullanın.
- Ters transkripsiyon dijital PCR (RT-dPCR) ile SARS-CoV-2 viral yükünün saptanması
NOT: SARS-CoV-2 RNA'nın mutlak kantifikasyonu için tek adımlı bir RT-dPCR analizi uygulanmıştır. Viral RNA kopya sayılarını belirlemek için nükleokapsid (N) genini hedefleyen spesifik primer-prob setleri kullanılmıştır.- RNA örneklerini ve reaktifleri buz üzerinde çözdürün.
- RT-dPCR reaksiyon karışımını üreticinin talimatlarına göre hazırlayın.
- Birleştirin 20 µL RT-dPCR reaksiyon karışımının şunlarla birlikte 20 µL RNA kalıbının. Karışımı kısa bir süre vorteksleyin, kısa süreli santrifüjleyin ve buz üzerinde tutun.
- Yükleyin 40 µL reaksiyon karışımını dijital PCR çip kuyucuklarına aktarın ve çipi cihaz protokolüne uygun olarak mühürleyin.
- Aşağıdaki termal döngü koşullarını kullanarak amplifikasyonu gerçekleştirin: 50 °C 40 dk boyunca (1 döngü), 95 °C 2 dakika boyunca (1 döngü), ardından 40 döngü boyunca 95 °C 15 saniye boyunca ve 57 °C 60 saniye boyunca uygulayın. Deteksiyon kanallarını YEŞİL (250 ms) ve KIRMIZI (150 ms) olarak ayarlayın.
- Ters transkripsiyon kantitatif PCR (RT-qPCR) ile inflamatuar sitokin ekspresyonunun tespiti
- Bir UV spektrofotometre kullanarak RNA konsantrasyonu ve saflığı belirlenmesi.
- Komplementer DNA (cDNA) sentezlemek için, üretici talimatlarına uygun olarak ters transkripsiyon başına 1.0 ng toplam RNA kullanın.
- SYBR Green PCR master mix ve gene özgü primerler kullanarak, reaksiyon başına kalıp olarak 10 ng cDNA ile RT-qPCR gerçekleştirin. Aşağıdaki döngü koşullarını uygulayın: 95 °C 2 dakika boyunca, ardından 40 döngü boyunca 95 °C 5 saniye boyunca ve 60 °C 10 saniye boyunca. Primer dizileri şurada listelenmiştir: Tablo 1.
NOT: Reaksiyon koşullarını kullanılan spesifik reaktiflere ve cihazlara göre optimize edin ve ilgili üretici talimatlarını izleyin. - İç referans geni olarak GAPDH'yi kullanın ve bağıl gen ekspresyon seviyelerini 2^-ΔCt yöntemiyle hesaplayın.−ΔΔCt yöntem
7. Enzimle bağlantılı immunosorbent assay (ELISA) ile akciğer dokusundaki pro-inflamatuar sitokinlerin saptanması24
NOT: ELISA kitlerini, farklı üreticiler tarafından sağlanan spesifik protokollere uygun olarak kullanın. Alternatif tedarikçilerden alınan kitleri kullanırken ilgili üreticinin talimatlarını kesinlikle takip edin.
- Akciğer dokusunu yukarıda açıklandığı şekilde homojenize edin. Homojenizasyon ortamı olarak PBS veya ELISA'ya özgü doku lizis tamponu kullanın.
- Homojenize edilmiş örnekleri santrifüjleyin (örneğin, 12,0 x g, 4 °C, 10 dk) ve sonraki analizler için süpernatantı toplayın.
- Kullanmadan önce ELISA kitini 30 dk boyunca oda sıcaklığında dengeleyin. Gerekli mikroplaka şeritlerini alüminyum folyo poşetten çıkarın.
- Standartları, örnek kuyucuklarını ve boş (blank) kuyucukları üretici talimatlarına göre hazırlayın. Standart kuyucuklarına 50 µL standart, örnek kuyucuklarına ise 10 µL örnek ve 40 µL örnek dilüsyon tamponu ekleyin. Her standart ve örnek için iki teknik tekrar gerçekleştirin.
- Boş kuyucuklar hariç, her standart ve örnek kuyucuğuna 10 µL horseradish peroxidase (HRP)-konjuge tespit antikoru ekleyin. Plakayı yapışkan filmle kapatın ve 37 °C'de 60 dk inkübe edin.
- İnkübasyon sonrası her kuyucuktaki sıvıyı boşaltın ve kalıntı sıvıları uzaklaştırmak için plakayı emici kağıt üzerine hafifçe vurun.
- Her kuyucuğa yıkama tamponu ekleyin, 1 dk bekletin ve ardından tamponu boşaltın. Plakayı kurutun. Bu yıkama adımını toplamda beş kez tekrarlayın.
- Her kuyucuğa sırasıyla 50 µL substrat çözeltisi A ve 50 µL substrat çözeltisi B ekleyin. Plakayı hafifçe karıştırın ve renk oluşumu için 37 °C'de karanlıkta 15 dk inkübe edin.
- Her kuyucuğa 50 µL durdurma çözeltisi ekleyerek reaksiyonu sonlandırın. Optik yoğunluğu (OD), bir mikroplaka okuyucu kullanarak 450 nm'de 10 dk içinde ölçün.
- Standart konsantrasyonlarını (x-ekseni) OD değerlerine (y-ekseni) karşı grafiğe dökerek bir standart eğri oluşturun ve eğriyi uydurun. OD değerlerini standart eğri denklemine yerleştirerek örneklerdeki hedef sitokin konsantrasyonlarını hesaplayın ve ilgili dilüsyon faktörleriyle çarpın.
- Bir BCA protein analiz kiti kullanarak akciğer dokusundaki toplam protein konsantrasyonunu belirleyin. Nihai sitokin seviyelerini toplam protein içeriğine göre normalize edin ve sonuçları miligram toplam protein başına hedef sitokin miktarı (örneğin, pg/mg protein) olarak ifade edin.
Sonuçlar
Model doğrulaması; hem kontrol hem de model gruplarında pulmoner histopatolojik değişiklikler, SARS-CoV-2 viral yükü, pro-inflamatuar sitokinlerin ve tip I interferonların seviyeleri değerlendirilerek gerçekleştirilmiştir.
İstatistiksel analiz
Veriler ortalama ± standart hata (SE) olarak sunulmuştur. Model ve kontrol grupları arasındaki karşılaştırmalar için eşleştirilmemiş Student t-testi kullanılmıştır. Bu test, iki bağımsız grup arasındaki sürekli değişkenlerin ortalamalarını karşılaştırmak için uygun olduğundan seçilmiştir. Bu çalışmada, fareler iki gruba bağımsız ve rastgele atanarak örnek bağımsızlığı varsayımı sağlanmıştır. p-değerinin < 0,05 olması istatistiksel olarak anlamlı kabul edilmiştir.
Farelerin vücut ağırlığındaki ve akciğer indeksindeki değişiklikler
Şekil 1B'de gösterildiği gibi, modelleme öncesindeki bazal değerlerle karşılaştırıldığında, model grubundaki farelerin vücut ağırlığı enfeksiyondan sonra anlamlı derecede azalmıştır ve istatistiksel olarak anlamlı bir fark saptanmıştır (p < 0.05). Şekil 1C'de gösterildiği üzere, model grubundaki farelerin akciğer indeksi, kontrol grubuna kıyasla anlamlı derecede artmıştır (p < 0.01); bu durum akciğer hasarının karakteristik özellikleriyle uyumludur. Deney süresince herhangi bir mortalite gözlenmemiş olup, tüm fareler bitiş noktasına kadar hayatta kalmıştır.
Farelerin akciğer dokusundaki histopatolojik değişiklikler ve SARS-CoV-2 viral yükü
Şekil 2, her iki gruptaki farelerin akciğer dokularındaki histopatolojik değişiklikleri ve viral yükü sunmaktadır. HE boyaması, kontrol grubunun bozulmamış akciğer mimarisi sergilediğini, model grubunun ise alveolar septal kalınlaşma, inflamatuar hücre infiltrasyonu ve alveolar yapısal bozulma dahil olmak üzere belirgin pulmoner patolojik değişiklikler gösterdiğini ortaya koymuştur (Şekil 2A). Kantitatif analiz, hem akciğer hasar skorunun hem de alveolar inflamasyon skorunun kontrol grubuna kıyasla model grubunda anlamlı şekilde arttığını (p < 0.001) teyit ederek, akciğer hasarı ve inflamatuar yanıtların başarıyla indüklendiğini kanıtlamıştır (Şekil 2B,C).
Ayrıca, model grubunun akciğer dokularında önemli düzeyde SARS-CoV-2 RNA ekspresyonu tespit edilmiştir. Enfeksiyon sonrası 3. günde, akciğer dokusundaki ortalama viral yük 5.5 x 10⁸ kopya/g değerine ulaşmış (Şekil 2D), bu durum başarılı viral replikasyonu ve akciğerdeki yüksek düzeydeki kalıcı varlığı göstermiştir.
Fare akciğer dokusundaki pro-inflamatuar sitokinlerde ve IFN-I'de meydana gelen değişiklikler
Şekil 3, fare akciğer dokusundaki enflamatuar sitokinlerde ve IFN-I'deki değişimleri göstermektedir. Sonuçlar, kontrol grubuyla karşılaştırıldığında, model grubunun akciğer dokusundaki IL-6, IL-1β ve TNF-α mRNA ekspresyonu ve protein seviyelerinin anlamlı derecede arttığını (p < 0.05) (Şekil 3A–F), bunun da enflamatuar yanıtın belirgin bir şekilde aktive olduğunu gösterdiğini ortaya koymuştur. Buna karşılık ELISA sonuçları, model grubunun akciğer dokusundaki IFN-α ve IFN-β seviyelerinin, kontrol grubundakilere kıyasla anlamlı derecede azaldığını (p < 0.001) (Şekil 3G,H), bunun da antiviral immün yanıtın baskılandığını düşündürdüğünü göstermiştir.
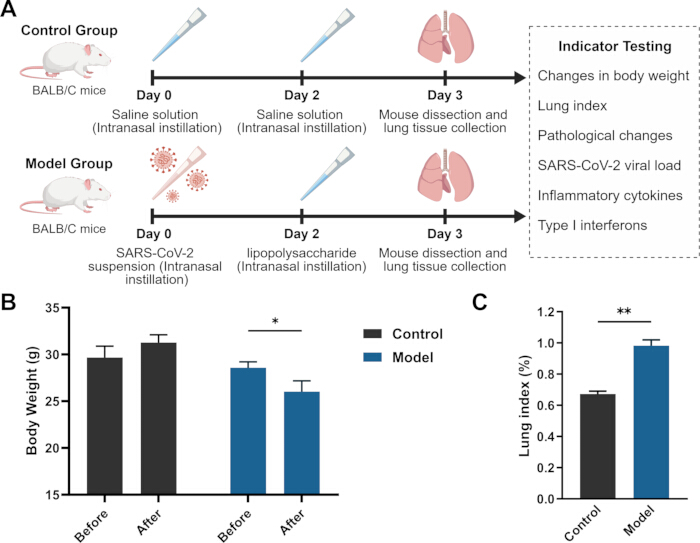
Şekil 1: Deneysel akış şeması ve farelerin vücut ağırlığı ile akciğer indeksindeki değişimler. (A) Deneysel akış şeması. (B) Farelerin vücut ağırlığındaki değişimler. (C) Farelerin akciğer indeksindeki değişimler. Veriler her grup için ortalama ± SE olarak gösterilmiştir. Gruplar arasındaki istatistiksel farkları değerlendirmek için Student's t-testi kullanılmıştır. *p < 0.05; **p < 0.01; ***p < 0.001. Şekil 1A BioGDP.com ile oluşturulmuştur25. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
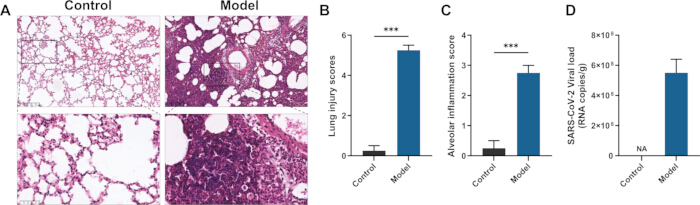
Şekil 2: Fare akciğer dokusundaki histopatolojik değişiklikler ve SARS-CoV-2 viral yükü. (A) Fare akciğer dokusunun HE boyaması. (B) Akciğer hasar skoru (Smith skoru). (C) Alveoler inflamasyon skoru (Szapiel skoru). (D) Akciğer dokusundaki SARS-CoV-2 viral yükü. Veriler her grup için ortalama ± SE olarak gösterilmiştir. Gruplar arasındaki istatistiksel farkları değerlendirmek için Student's t-testi kullanılmıştır. *p < 0.05; **p < 0.01; ***p < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
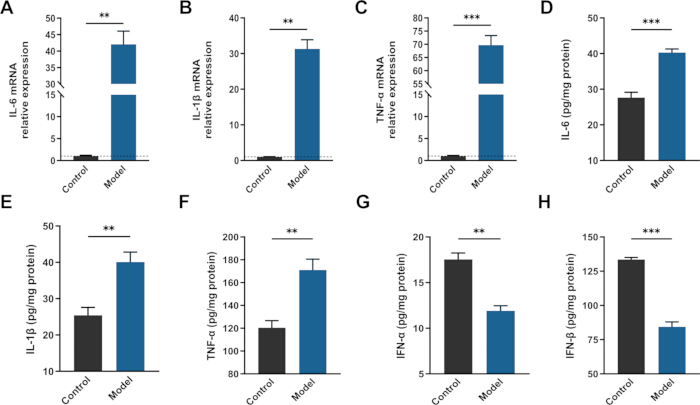
Şekil 3: Fare akciğer dokusundaki pro-inflamatuar sitokinler ve IFN-I'deki değişiklikler. (A–C) Fare akciğer dokusundaki pro-inflamatuar sitokinler IL-6, IL-1β ve TNF-α'nın bağıl mRNA ekspresyonu. (D–F) Fare akciğer dokusundaki IL-6, IL-1β ve TNF-α protein seviyeleri. (G–H) Fare akciğer dokusundaki IFN-α ve IFN-β seviyeleri. Veriler her grup için ortalama ± SE olarak gösterilmiştir. Gruplar arasındaki istatistiksel farkları değerlendirmek için Student's t-testi kullanılmıştır. *p < 0.05; **p < 0.01; ***p < 0.001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Primer | İleri dizi (5’ to 3’) | Ters dizi (5’ to 3’) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
Tablo 1: Bu çalışmada kullanılan primer dizileri. Hedef ve iç referans genler için ileri ve geri primer dizileri (5′'den 3′'e) listelenmiştir.
Ek Dosya 1 Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 2 Bu dosyayı indirmek için lütfen buraya tıklayınız.
Tartışma
Bu çalışma, SARS-CoV-2 ve LPS'nin intranazal instilasyonu yoluyla COVID-19 ile ilişkili akciğer hasarının bir fare modelini oluşturmuştur. Sonuçlar, SARS-CoV-2 ve LPS'nin intranazal olarak birlikte uygulanmasının, IFN-I sinyalizasyonunun baskılanmasıyla birlikte güçlü bir inflamatuar yanıt oluşturduğunu göstermiştir. Model grubundaki farelerde, sistemik yıkımı ve şiddetlenmiş pulmoner hasarı gösteren belirgin vücut ağırlığı kaybı ve artmış akciğer indeksi gözlemlenmiştir. HE boyama, model grubunun alveolar mimarinin bozulması ve yaygın inflamatuar hücre infiltrasyonu ile karakterize tipik difüz akciğer hasarı sergilediğini doğrulamıştır. Ek olarak, kontrol grubuyla karşılaştırıldığında, model grubundan alınan akciğer dokularında IL-6, IL-1β ve TNF-α dahil olmak üzere temel pro-inflamatuar sitokinlerin ekspresyonunda belirgin bir artış görülürken, IFN-α ve IFN-β seviyeleri belirgin şekilde azalmıştır. Bu bulgular, baskılanmış antiviral immünite ile birlikte pro-inflamatuar yanıtların aşırı aktivasyonu ile karakterize bir immün dengesizliği durumuna işaret etmekte ve bu modelin hastalığın immünopatolojik özelliklerini yeniden canlandırmadaki potansiyel değerini desteklemektedir.
SARS-CoV-2 enfeksiyonu, COVID-19 ile ilişkili organ hasarının gelişiminde merkezi bir itici faktör olarak kabul edilmektedir26,27. Bu çalışmada, model farelerin akciğer dokularında yüksek viral yük tespit edilmiş; buna belirgin difüz akciğer hasarı ve inflamatuar hücre infiltrasyonu eşlik etmiştir, bu da viral enfeksiyonun pulmoner inflamatuar yanıtın temel bir tetikleyicisi olabileceğini düşündürmektedir. Önceki raporlarla uyumlu olarak, SARS-CoV-2 enfeksiyonu pulmoner patolojik değişiklikleri ve immün aktivasyonu indükleyebilir28; ancak farelerdeki konvansiyonel SARS-CoV-2 enfeksiyon modelleri genellikle sınırlı inflamatuar yanıtlar sergiler ve COVID-19 hastalarında gözlenen hiperinflamatuar fenotipi tam olarak yeniden üretemeyebilir18,19,20. Bu nedenle, hastalıkla ilişkili immün-inflamatuar disregülasyonun altında yatan mekanizmaları daha iyi araştırmak için ek innate immün stimülasyon gerekebilir. İnnate immünitenin prototipik bir aktivatörü olan LPS, Toll-benzeri reseptör 4'e (TLR4) bağlanır ve hem MyD8-bağımlı hem de TRIF-bağımlı sinyal yolaklarını tetikleyerek NF-κB gibi temel inflamatuar transkripsiyonel programları aktive eder ve çok sayıda pro-inflamatuar sitokin ekspresyonunu indükler29. Önceki çalışmalar ayrıca, LPS stimülasyonunun tek başına veya SARS-CoV-2 ile ilişkili bileşenlerle kombinasyon halinde, inflamatuar yanıtları artırabildiğini ve akut akciğer hasarı benzeri fenotiplere katkıda bulunabildiğini göstermiştir; bu da COVID-19 ile ilgili araştırmalarda LPS'nin inflamatuar bir stimülas olarak dahil edilmesinin rasyonelliğini desteklemektedir30,31,32. Mevcut çalışmada, model grubunun akciğer dokularında IL-6, IL-1β ve TNF-α seviyelerinin anlamlı derecede yükselmiş olduğu gözlemlenmiş olup, bu durum LPS'nin SARS-CoV-2 enfeksiyonu bağlamında basitçe bakteriyel koenfeksiyonu temsil etmekten ziyade bir inflamatuar amplifikatör olarak işlev gördüğünü düşündürmektedir. Viral enfeksiyon arka planından yoksun olan sadece LPS içeren inflamatuar modellerle karşılaştırıldığında, bu çalışmada oluşturulan kombine model, SARS-CoV-2 kaynaklı immün değişiklikleri LPS aracılı inflamatuar aktivasyonla entegre ederek COVID-19 ile ilişkili akciğer hasarını incelemek için daha kapsamlı bir platform sağlamaktadır.
IFN-I, konakçının antiviral immünitesinin temel efektör molekülleridir ve geniş bir interferon stimüle gen (ISG) yelpazesini indükleyerek kapsamlı antiviral fonksiyonlar sergiler3. Ancak, SARS-CoV-2'nin; örüntü tanıma reseptörü (PRR) aracılı sinyal iletimine müdahale, interferon düzenleyici faktör (IRF) aktivasyonunun baskılanması ve aşağı akıştaki JAK-STAT sinyalleme yolunun bloke edilmesi dahil olmak üzere birden fazla mekanizma aracılığıyla IFN-I sinyallemesini antagonize ederek konakçının antiviral savunmalarını bozduğu kanıtlanmıştır14,34. Bu çalışmada, model grubunun akciğer dokularında IFN-α ve IFN-β seviyelerinin önemli ölçüde azaldığı gözlemlenmiş olup; bu durum, viral enfeksiyon ve LPS stimülasyonunun sinerjik etkileri altında konakçının yalnızca aşırı inflamatuar aktivasyon sergilemekle kalmayıp, aynı zamanda eş zamanlı olarak antiviral immünite baskılanması yaşadığını göstermektedir. Bu tür bir immün disregülasyon, COVID-19'un gelişiminde ve ilerlemesindeki temel immünolojik özelliklerden biri olarak kabul edilmektedir8. Bu nedenle, mevcut model bu karmaşık patolojik süreci kısmen yeniden canlandırarak, COVID-19 ile ilişkili immün disregülasyonun daha fazla araştırılması ve ilgili terapötik müdahalelerin geliştirilmesi için değerli bir deneysel araç sunmaktadır.
Bu çalışmada SARS-CoV-2 ve LPS uygulamasının kombinasyonuna dayalı olarak oluşturulan COVID-19 fare modeli, yükselmiş pro-inflamatuar sitokinler ve IFN-I sinyallemesinin baskılanması dahil olmak üzere hastalık patolojisinin temel özelliklerini yeniden oluşturabilmekte ve böylece COVID-19 ile ilişkili akciğer hasarında gözlenen immün dengesizliği kısmen taklit etmektedir. Tekli viral enfeksiyon modelleriyle karşılaştırıldığında, bu kombine yaklaşım, hastalıkla ilgili inflamatuar yanıtları artırmak için ekzojen bir doğuştan gelen immün stimülüs içermekte ve böylece aşırı inflamasyon ve bozulmuş antiviral immünite ile ilişkili patolojik süreçlerin incelenmesine olanak tanımaktadır. Buna göre bu model, in vivo ortamda aday anti-inflamatuar, immünomodülatör ve akciğer onarım stratejilerini, özellikle sadece viral replikasyonu değil, immün disregülasyonu hedefleyenleri değerlendirmek için değerli olabilir.
Bununla birlikte, bu çalışmanın bazı kısıtlılıklarının kabul edilmesi gerekir. İlk olarak, LPS inflamasyonu öncelikle TLR4 aktivasyonu yoluyla tetikler; bu durum, klinik COVID-19'daki karmaşık virüs-konak etkileşimlerini tam olarak yansıtmayabilir ve inflamatuar yanıtı değiştirebilir. İkinci olarak, ön optimizasyon aşamasında yalnızca SARS-CoV-2 ve yalnızca LPS gruplarıyla karşılaştırmalı deneyler yapılmış olsa da, bu veriler makaleye dahil edilmemiştir. Gelecekteki çalışmalar, her bir bileşenin katkısını daha iyi tanımlamak için SARS-CoV-2 ve LPS'nin bireysel ve kombine etkilerini daha ayrıntılı şekilde değerlendirecektir. Üçüncü olarak, bu model, SARS-CoV-2 enfeksiyonunun tamamen doğal seyri yerine, özellikle immün-inflamatuar disregülasyon olmak üzere COVID-19 ile ilişkili akciğer hasarının temel immünopatolojik özelliklerini yeniden üretmek üzere tasarlanmıştır. Son olarak, SARS-CoV-2 dozu ve LPS konsantrasyonu ön optimizasyon deneylerine dayanarak belirlenmiş olsa da; fare suşlarındaki, viral varyantlardaki, test yöntemlerindeki ve deneysel koşullardaki farklılıklar modelin tekrarlanabilirliğini etkileyebilir ve farklı araştırma ortamlarında daha fazla doğrulama gerektirebilir. Bu protokolde açıklanan optimize edilmiş koşullar altında, genel model kurulum başarı oranı yaklaşık %90'dı; ancak bu oran farklı deneysel ortamlarda değişkenlik gösterebilir. Gelecekteki çalışmalar; virüs-konak etkileşimlerini daha iyi karakterize etmek ve terapötik hedefleri belirlemek için farklı SARS-CoV-2 varyantlarını, genetik olarak modifiye edilmiş fare suşlarını veya tek hücreli transkriptomik analiz gibi gelişmiş immün profilleme yaklaşımlarını dahil ederek bu modeli daha da optimize edebilir. Bu çalışmalar, modelin COVID-19 araştırmaları için translasyonel uygunluğunu daha da artırabilir.
Açıklamalar
Yazarların beyan edilecek herhangi bir çıkar çatışması yoktur.
Teşekkürler
Bu araştırma, Çin Ulusal Doğal Bilimler Vakfı (82374291); Sichuan Bilim ve Teknoloji Programı (2024NSFJQ059); Sichuan Geleneksel Çin Tıbbı İdaresi'nin bilimsel araştırma özel konusu (2024zd05); 202 “Tianfu Qingcheng Planı” Tianfu Bilim ve Teknoloji Öncü Yetenekler Projesi (Chuan Qingcheng No. 1090); Chengdu Sağlık Komisyonu ve Chengdu Geleneksel Çin Tıbbı Üniversitesi Ortak İnovasyon Fonu (WXLH202403091) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Otomatik Doku İşlemci | Dakewe Biotech Co., Ltd. | HP30 | Dokudehidratasyon için kullanılır. |
| Otomatik Boyama Cihazı | Leica Biosystems | LEICA ST5010 | HE boyama için kullanılır. |
| Santrifüj | DLAB Scientific | D3024R | Numunelerin veya reaktiflerin santrifüjlenmesi için kullanılır. |
| Sabit Sıcaklıklı Su Banyosu | Shanghai LICHEN-BX Instrument Techonology Co., Ltd. | HH-6 | Sabit sıcaklıklı su banyoları için kullanılır. |
| Dijital PCR Sistemi | QIAGEN | QIAcuity One | RT-dPCR için kullanılır. |
| TransScript All-in-One First-Strand cDNA Synthesis SuperMix for qPCR (One-Step gDNA Removal) | TransGen Biotech Co.,Ltd. | AT341 | Ters transkripsiyon için kullanılır. |
| Eozin Çözeltisi | BASO | BA4024 | Histolojik boyama için kullanılır. |
| Floresan Kantitatif PCR Sistemi | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | RT-qPCR için kullanılır. |
| Hematoksilin Çözeltisi | BASO | BA4041 | Histolojik boyama için kullanılır. |
| IBM SPSS Statistics yazılımı | IBM Corp., Armonk, NY, USA | version 2.0 | İstatistiksel analiz için kullanılır. |
| Escherichia coli O5:B5 kaynaklı Lipopolisakkaritler | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L280 | Fare modellemesi için kullanılır. |
| Mikroplaka Okuyucu | Molecular Devices | SpectraMax Plus 384 | Elisa için kullanılır. |
| Mouse IFN-α ELISA KİTİ | ZCIBIO Technology Co., Ltd. | ZC-37863W | Fare akciğer dokusundaki IFN-α seviyelerini tespit etmek için kullanılır. |
| Mouse IFN-β ELISA KİTİ | ZCIBIO Technology Co., Ltd. | ZC-3787W | Fare akciğer dokusundaki IFN-β seviyelerini tespit etmek için kullanılır. |
| Mouse IL-1β ELISA KİTİ | ZCIBIO Technology Co., Ltd. | ZC-37974W | Fare akciğer dokusundaki IL-1β seviyelerini tespit etmek için kullanılır. |
| Mouse IL-6 ELISA KİTİ | ZCIBIO Technology Co., Ltd. | ZC-3798W | Fare akciğer dokusundaki IL-6 seviyelerini tespit etmek için kullanılır. |
| Mouse TNF-α ELISA KİTİ | ZCIBIO Technology Co., Ltd. | ZC-39024W | Fare akciğer dokusundaki TNF-α seviyelerini tespit etmek için kullanılır. |
| One-Step RT-PCR Kit for Digital PCR | QIAGEN | 4829104 | Dijital PCR için kullanılır. |
| Parafin Gömme Cihazı | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | Fare akciğer dokusunun parafine gömülmesi için kullanılır. |
| QuantiNova SYBR PCR Mix Kit | QIAGEN | 129280 | RT-qPCR için kullanılır. |
| RNeasy Plus Universal Mini Kit | QIAGEN | 1062832 | Toplam RNA ekstraksiyonu için kullanılır. |
| Mikrotom | Leica Biosystems | LEICA RM235 | Parafin kesitleri için kullanılır. |
| Doku Homojenizatörü için Paslanmaz Çelik Bilyeler | Beyotime Biotechnology | F621 | Akciğer dokusunu homojenize etmek için kullanılır. |
| XG primer Pool 1.0 for Digital PCR | QIAGEN | 4828104 | Dijital PCR için kullanılır. |
| Zoletil 50 | VIRBAC | BN9VS7A | Fareleri anestezi etmek için kullanılır. |
Kaynaklar
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.