Zaman çözünürlüklü bir FRET analizi, PROTAC'ların enzimatik aktiviteyi etkileyip etkilemediğini değerlendirmek için Mpro substrat klevaj kinetiğini izleyerek, degradasyon ve inhibitör etkilerin fonksiyonel olarak ayrıştırılmasına olanak tanır.
Yöntem makalesi
SARS-CoV-2 Mpro’nun Enzimatik İnhibisyonu ile PROTAC Aracılı Degradasyonunu Ayırt Etmek İçin Zaman Çözünürlüklü FRET Aktivite Analizi
Bu makalede
Özet
Özet
Proteoliz hedefli kimerikler (PROTAC'ler), antiviral ilaç geliştirme için gelecek vaat eden bir strateji olarak ortaya çıkmaktadır ve mekanistik olarak klasik küçük moleküllü inhibitörlerden farklıdırlar. SARS-CoV-2 ana proteazı (Mpro) gibi viral proteazları hedefleyen birçok PROTAC tasarımı, aktif bölge inhibitörlerinden türetilmiş harp başlıkları kullanır; böylece yakınlık kaynaklı degradasyonu potansiyel enzimatik inhibisyon ile birleştirir. Bu ikili işlevsellik, degradasyon kaynaklı etkiler ile viral replikasyon üzerindeki katalitik aktivitenin doğrudan inhibisyonu arasındaki deneysel ayrımı zorlaştırmaktadır. Bunu gidermek için, inhibitörlerin ve degrader'ların varlığında rekombinant Mpro'nun katalitik aktivitesini nicelleştirmek amacıyla floresan rezonans enerji transferi (FRET) tabanlı bir analiz geliştirdik. Analiz, bir florofor ve bir söndürücü ile çevrelenmiş, kanonik Mpro cleavage dizisini içeren söndürülmüş florojenik bir peptid substrat (MI-2822) kullanır. Proteolitik cleavage, floresansta zamana bağlı bir artışla sonuçlanarak enzim aktivitesinin sürekli kinetik izlemesine olanak tanır. Escherichia coli içinde eksprese edilen rekombinant Mpro saflaştırılır ve tanımlanmış tampon koşulları altında FRET substratı ile inkübe edilir; enzimatik aktivite profillerini elde etmek için floresan zaman içinde kaydedilir. Analiz, substrat cleavage işlemini etkili bir şekilde baskılayan, klinik olarak onaylanmış aktif bölge inhibitörü nirmatrelvir kullanılarak kontrol edilir. Buna karşın, katalitik yarığın dışındaki Mpro'yu hedefleyen PROTAC'ler floresan artışını önemli ölçüde azaltmazlar; bu da test edilen koşullar altında enzimatik aktiviteyi ölçülebilir düzeyde inhibe etmediklerini gösterir. Bu protokol, enzimatik inhibisyon ile degradasyonla ilişkili mekanizmalar arasında ayrım yapmak için sağlam ve tekrarlanabilir bir yaklaşım sunar. Viral proteazları hedefleyen PROTAC'lerin ve diğer bifunksiyonel moleküllerin mekanistik karakterizasyonu için geniş ölçüde uygulanabilir.
Giriş
Hedefli protein yıkımı (TPD), ilgilenilen proteinleri seçici olarak ortadan kaldırmak için hücresel ubikitin-proteazom sisteminden (UPS) yararlanır. Bu strateji, bir hedef proteine ve bir E3 ubikitin ligaza aynı anda bağlanan ve yaygın olarak proteoliz hedefli kimeralar (PROTAC'lar) olarak adlandırılan heterobifonksiyonel moleküllere dayanmaktadır.2E3 ubiquitin ligazlar, geniş ve çeşitli bir hücresel enzim sınıfını temsil eder.3substrat proteinlerin ubiquitilasyonunu katalize ederek onları proteazomal degradasyon için işaretleyen4.
PROTAC'lar, bir kimyasal bağlayıcı aracılığıyla birbirine bağlanan, hedef protein için bir ligand ve bir E3 ligaz için bir liganddan oluşur5. PROTAC'lar, hedef protein ile E3 ligaz arasında yakınlık oluşturarak, ubiquitin transferini ve ardından hedef proteinin proteazom tarafından yıkımını sağlayan üçüncül bir kompleksin oluşumunu teşvik eder6,7. Klasik küçük moleküllü inhibitörlerle karşılaştırıldığında, bu yaklaşım çeşitli avantajlar sunar8. PROTAC'lar katalitik olarak etki edebilir, bu da düşük konsantrasyonlarda etkili hedef tüketimine olanak tanır ve mevcut ligandları veya inhibitörleri hedefleme birimleri olarak kullanabilirler5. Ayrıca, yıkım temelli stratejiler, direnç sağlayan mutasyonların varlığında etkinliğini koruyabilir9,10 ve iyi tanımlanmış bağlanma cepleri olmayanlar gibi doğrudan inhibe edilmesi zor olan proteinlere uygulanabilir11.
Antiviral ilaç geliştirme bağlamında, viral proteinleri hedefleyen rapor edilmiş birçok PROTAC, aktif bölge inhibitörlerinden türetilen savaş başlıklarına dayanmaktadır10,12,13,14. Sonuç olarak, bu moleküller sıklıkla enzimatik inhibisyonu degradasyon kaynaklı hedef azalmasıyla birleştirerek antiviral aktivitenin mekanistik yorumunu karmaşıklaştırmaktadır. Hücresel antiviral assayler, hedef degradasyonu ve viral replikasyonun inhibisyonu dahil olmak üzere birden fazla sürecin birleşik sonucunu entegre etseler de, inhibisyon kaynaklı etkiler ile degradasyon kaynaklı etkiler arasında genellikle net bir ayrım yapılmasına izin vermezler. Ayrıca, birçok viral proteinin belirgin tanımlanmış bağlanma cepleri veya katalitik bölgelerinin olmaması, mevcut PROTAC tasarım stratejileri için erişilebilirliklerini sınırlamaktadır.
Bu zorluğun üstesinden gelmek için, enzimatik aktivitenin zaman çözünürlüklü izlenmesine olanak tanıyan, bir SARS-CoV-2 Mpro peptid substratı kullanan floresan rezonans enerji transferi (FRET) tabanlı bir analiz geliştirdik. Bu yaklaşım, PROTAC ile ilişkili etkilerin ve doğrudan enzimatik inhibisyonun ayırt edilmesini sağlar. Bu analizle, katalitik yarığın dışında bağlanan ve test edilen koşullar altında proteaz aktivitesine ölçülebilir düzeyde müdahale etmeyen, ancak degrade etme kapasitesini koruyan bir Mpro hedefli degrader'ı değerlendirdik. Paralel olarak, klinik olarak onaylanmış Mpro inhibitörü nirmatrelvir kontrol olarak kullanılmış ve enzimatik aktivitede belirgin bir azalma ile sonuçlanmıştır.
Özetle, bu analiz enzimatik inhibisyon ile degradasyonla ilgili etkileri birbirinden ayırt etmek için sağlam bir yöntem sunmaktadır. Bu yöntem, özellikle mekanizmaların çözülmesinin antiviral aktivitelerini anlamak için temel teşkil ettiği, enzimatik olarak aktif proteinleri hedefleyen degraderların karakterizasyonu için değerlidir (Şekil 1).
Protokol
1. Materyallerin hazırlanması
- Ekspresyon sistemini hazırlayın
- Ekspresyon konakçısı olarak kimyasal olarak kompetan Escherichia coli BL21 Rosetta2 hücrelerini kullanın.
- N- ve C-termini bölgelerinde 6× histidin etiketleri içeren ve SARS-CoV-2 Mpro kodlayan bir pET28a(+) ekspresyon vektörü kullanın.
- Büyütme besiyerini hazırlayın
- 10 g/L tryptone, 5 g/L maya ekstresi ve 10 g/L sodyum klorürün (NaCl) distile su içinde çözülmesiyle 5 L Luria–Bertani (LB) besiyeri hazırlayın. Besiyerini 121 °C'de 20 dk boyunca otoklavlayarak sterilize edin.
- IPTG stok çözeltisini hazırlayın
- 0.4 M'lık bir stok çözelti hazırlamak için 4.20 g IPTG'yi 45 mL distile su içinde çözün. Stok çözeltiyi −20 °C'de saklayın.
- Tamponları hazırlayın
- 50 mM Tris, 300 mM NaCl, %5 gliserol ve %0.5 Triton X-100 içeren 1 L Mpro lizis tamponu (MLB) hazırlayın (pH 7.5).
- 20 mM Tris ve 150 mM NaCl içeren 4 L Mpro protein tamponu (MB) hazırlayın (pH 7.5).
- 20 mM Tris, 150 mM NaCl ve 20 mM imidazol içeren 500 mL yıkama tamponu (WB) hazırlayın (pH 7.5).
- Her biri 20 mM Tris ve 150 mM NaCl içeren (pH 7.5); Elüsyon Tamponu 1 (100 mM imidazol), Elüsyon Tamponu 2 (250 mM imidazol) ve Elüsyon Tamponu 3'ten (500 mM imidazol) 100'er mL hazırlayın.
- Merkaptoetanol, bromofenol mavisi, gliserol, Tris (pH 6.8), sodyum dodesil sülfat (SDS) ve distile su içeren 1 mL 4× numune tamponu hazırlayın.
- Distile su içinde KCl, KH₂PO₄, Na₂HPO₄ ve NaCl içeren 1 L fosfat tamponlu salin (PBS) hazırlayın.
2. Escherichia coli'de Mpro ekspresyonu
- Ekspresyon plazmidini E. coli hücrelerine transforme edin
- Ticari bir transformasyon kiti kullanarak kimyasal olarak kompetan E. coli Rosetta2 hücreleri hazırlayın. 5 mL süper optimal besiyeri (SOB) mediumu ekize edin ve kültürü 37 °C'de sallayarak gece boyunca inkübe edin.
- Gece boyu büyütülen kültürü 100 mL SOB mediumuna aktarın ve hücreleri OD600 değeri 0,4–0,5 olana kadar büyütün. Kültürü buz üzerinde soğutun ve 1.800 × g hızda 5 dk boyunca santrifüjleyin.
- Hücre peletini yıkama tamponu ile iki kez yıkayın ve kompetan tamponu içinde yeniden süspanse edin. Kompetan hücrelerden 50 µL'lik alikotlar hazırlayın ve −70 °C'de saklayın.
- Ekspresyon plazmidini kimyasal olarak kompetan bakterilere transforme edin
- Kompetan hücrelerin bir alikotunu buz üzerinde 10 dk boyunca çözdürün. 1 µL plazmid DNA (<50 ng) ekleyin ve nazikçe karıştırın.
- Hücreleri buz üzerinde 30 dk boyunca inkübe edin. Transforme edilen hücreleri, 100 µg/mL kanamisin içeren LB agar (1,5% agar) plaklarına ekin ve plakları 37 °C'de gece boyunca (yaklaşık 18 sa) inkübe edin.
- Bakteriyel kültürü genişletin
- 100 µg/mL kanamisin içeren 5 mL LB mediumunu tek bir koloni ile ekize edin. Kültürü 37 °C'de, 200 rpm hızda sallayarak gece boyunca inkübe edin.
- Gece boyu büyütülen kültürü, 100 µg/mL kanamisin içeren 100 mL LB mediumuna aktarın. Kültürü aynı koşullar altında gece boyunca inkübe edin.
- Gece boyu büyütülen kültürden 35 mL'yi, 100 µg/mL kanamisin içeren 1 L LB mediumuna aktarın. Kültürü, OD600 değeri 1,0–1,2'ye ulaşana kadar 37 °C'de, 140 rpm hızda sallayarak inkübe edin.
- Mpro ekspresyonunu indükleyin
- Kültürü 16 °C'ye soğutun. Protein ekspresyonunu indüklemek için 1 mL 0,4 M IPTG (final konsantrasyonu 0,4 mM) ekleyin.
- Kültürü 16 °C'de, 140 rpm hızda sallayarak 72 sa boyunca inkübe edin.
3. Mpro hasadı ve saflaştırılması
- Bakteriyel hücrelerin hasadı
- Kültürü 5,000 × g ve 4 °C'de 1 saat boyunca santrifüjleyin. Supernatanı atın ve peleti 35 mL fosfat tamponlu salin (PBS) içinde yeniden süspande edin.
NOT: Sonraki saflaştırma aşamalarında protein geri kazanımını maksimize etmek için peletin tamamen süspande olduğundan emin olun. - Süspansiyonu 50 mL'lik bir santrifüj tüpüne aktarın ve 6,800 × g ve 4 °C'de 10 dakika santrifüjleyin. Supernatanı atın ve hücre peletini −20 °C'de saklayın.
- Kültürü 5,000 × g ve 4 °C'de 1 saat boyunca santrifüjleyin. Supernatanı atın ve peleti 35 mL fosfat tamponlu salin (PBS) içinde yeniden süspande edin.
- Hücrelerin lizizi
- Hücre peletini buz üzerinde 15–30 dakika boyunca çözdürün. Peleti, homojen hale gelene kadar 80 mL Mpro liz tamponu (MLB) içinde yeniden süspande edin.
NOT: Protein degradasyonunu ve agregasyonunu minimize etmek için bu adım boyunca tamponu ve örneği buz üzerinde tutun. - Süspansiyonu buz üzerinde, %50–60 amplitüd ile 30 saniyelik darbeler halinde ve darbeler arasında 2 dakikalık soğutma aralıklarıyla 10 dakika boyunca sonikasyona tabi tutun.
- Lizatı santrifüj tüplerine aktarın ve 60,000 × g ve 4 °C'de 1 saat boyunca santrifüjleyin. Afinite saflaştırması için berraklaştırılmış supernatanı toplayın.
- Hücre peletini buz üzerinde 15–30 dakika boyunca çözdürün. Peleti, homojen hale gelene kadar 80 mL Mpro liz tamponu (MLB) içinde yeniden süspande edin.
- İmmobilize metal afinite kromatografisi ile Mpro saflaştırması
- Afinite kolonunu 10 kolon hacmi (CV) distile su ve ardından 10 CV Mpro protein tamponu (MB) ile dengeleyin. Örneği yüklemeden önce yıkama ve elüsyon tamponlarını hazırlayın.
NOT: Bağlanma verimliliğini azaltabileceği için kolona hava kabarcığı girmesinden kaçının. - Berraklaştırılmış lizatı, düşük bir akış hızında dengelenmiş kolona yükleyin. Geçen sıvıyı (flow-through) toplayın.
NOT: His-etiketli proteinin bağlanmasını maksimize etmek için yeterince düşük bir akış hızını koruyun. - Kolonu 50 mL yıkama tamponu (WB) ile yıkayın. Gerekliyse, kalite değerlendirmesi için yıkama fraksiyonunun son 2 mL'sini toplayın.
- Bağlı proteini sırasıyla 6 mL Elüsyon Tamponu 1 (üç adet 2 mL fraksiyon), 6 mL Elüsyon Tamponu 2 (üç adet 2 mL fraksiyon) ve 8 mL Elüsyon Tamponu 3 (dört adet 2 mL fraksiyon) ile elüye edin. Toplanan tüm fraksiyonları buz üzerinde tutun.
- Afinite kolonunu 10 kolon hacmi (CV) distile su ve ardından 10 CV Mpro protein tamponu (MB) ile dengeleyin. Örneği yüklemeden önce yıkama ve elüsyon tamponlarını hazırlayın.
- Afinite kolonunun rejenerasyonu
- Kolonu sırasıyla 10 CV Elüsyon Tamponu 3, 10 CV Mpro protein tamponu, 10 CV distile su ve 10 CV %20 etanol ile yıkayın.
- Protein kalitesinin değerlendirilmesi
- Her bir protein örneğinin 45 µL'sini, 15 µL 4× örnek tamponu ile karıştırın. Örnekleri 100 °C'de 10 dakika boyunca ısıtın ve kısaca santrifüjleyin.
- Örnekleri %10–12'lik bir SDS-PAGE jelinde, boya cephesi jelin altına ulaşana kadar 150 V'da ayırın.
- Jeli 15–30 dakika boyunca Coomassie boyası ile boyayın. Jeli distile su ile durulayın ve protein saflığını değerlendirin (beklenen moleküler ağırlık: yaklaşık 36 kDa).
4. Protein hazırlama
- Tampon değişimi ve protein konsantrasyonu
- Santrifüj filtreleri (MWCO: 10 kDa) kullanarak protein tamponunu Mpro protein tamponu (MB) ile değiştirin. Protein çözeltisini yaklaşık 1 mL nihai hacme kadar konsantre edin.
- Protein miktarının belirlenmesi
- Protein konsantrasyonunu bir spektrofotometre kullanarak ölçün. Ölçümden önce cihazı MB ile sıfırlayın.
- Uygun sönümleme katsayısını (ε = 0.931) kullanarak protein konsantrasyonunu hesaplayın.
5. Analiz koşullarını optimize edin
- Analiz reaktiflerini hazırlayın
- Mpro protein tamponu (MB) içerisinde, saflaştırılmış Mpro için 3 µM'lık bir stok çözelti ve peptit substratı için 300 µM'lık bir stok çözelti hazırlayın.
- Seriyel dilüsyonları hazırlayın
- MB içerisinde, Mpro stok çözeltisinin altı adet iki katlı seriyel dilüsyonunu hazırlayın.
- MB içerisinde, peptit substratının üç adet iki katlı seriyel dilüsyonunu hazırlayın.
- Plaka okuyucuyu konfigüre edin
- Plaka okuyucuyu 37 °C'ye ön ısıtın. Eksitasyon dalga boyunu 320 nm, emisyon dalga boyunu 420 nm (20 nm bant genişliği) ve toplam 60 dakikalık ölçüm süresi için ölçüm aralığını 60 saniye olarak ayarlayın.
NOT: Reaksiyon substrat eklendiği anda başladığı için, substratı eklemeden önce tüm analiz bileşenlerini hazırlayın.
- Plaka okuyucuyu 37 °C'ye ön ısıtın. Eksitasyon dalga boyunu 320 nm, emisyon dalga boyunu 420 nm (20 nm bant genişliği) ve toplam 60 dakikalık ölçüm süresi için ölçüm aralığını 60 saniye olarak ayarlayın.
- Analiz plakasını hazırlayın
- Siyah bir 96 kuyucuklu plakanın 1–6. sütunlarına, her bir Mpro dilüsyonundan 25 µL ekleyin. Enzimsiz kontrol olarak 7. sütuna 25 µL MB ekleyin.
- Her kuyucuğa 100 µL MB ekleyin.
NOT: Arka plan floresansını minimize etmek ve floresans sinyalini optimize etmek için siyah 96 kuyucuklu plakalar kullanın.
- Reaksiyonu başlatın
- A–C satırlarına 25 µL peptit substratı ekleyin. Substratsız kontrol olarak D satırına 25 µL MB ekleyin.
- Substratı ekledikten hemen sonra floresans ölçümünü başlatın.
- Verileri analiz edin
- Floresans verilerini dışa aktarın ve bağıl floresans birimlerini (RFU) zamana bağlı olarak grafiğe dökün.
- Erken sinyal doygunluğuna ulaşmadan yüksek sinyal-gürültü oranı sağlayan Mpro ve substrat konsantrasyonlarını seçin (örneğin, 500 nM Mpro ve 50 µM substrat).
- Kinetik parametreleri belirleyin (isteğe bağlı)
- Başlangıç reaksiyon hızlarını Michaelis–Menten denklemine uydurarak florojenik substratın kinetik parametrelerini belirleyin. 2-amino-N-(3-aminopropil) benzamid ile oluşturulan bir kalibrasyon eğrisi kullanarak floresans birimlerini ürün konsantrasyonuna dönüştürün. Kalibrasyon floroforunun detaylı sentezi Ek Dosya 1'de verilmiştir.
6. FRET analizini gerçekleştirin
- Plaka okuyucuyu hazırlayın
- Plaka okuyucuyu 37 °C'ye önceden ısıtın. Eksitasyon dalga boyunu 320 nm, emisyon dalga boyunu 420 nm (20 nm bant genişliği) ve veri toplama aralığını 60 saniye olarak ayarlayarak toplam ölçüm süresini 60 dk yapın.
- Analiz reaktiflerini hazırlayın
- Purifiye Mpro (3 µM), peptid substrat (300 µM) ve test bileşiklerinin Mpro protein tamponu (MB) içindeki stok çözeltilerini hazırlayın.
- Tüm örneklerde sabit bir final DMSO konsantrasyonu sağlayarak, her bir test bileşiğinin DMSO içinde seri dilüsyonlarını hazırlayın. Sadece DMSO ve sadece tampon içeren kontroller ekleyin.
- Reaksiyon karışımlarını hazırlayın
- Her bir test bileşiğini veya kontrolü 100 µL MB içinde dilüye edin. Final enzim konsantrasyonu 500 nM olacak şekilde 25 µL Mpro ekleyin.
- Reaksiyon karışımlarını derhal siyah bir 96 kuyucuklu plakanın kuyucuklarına aktarın.
- Reaksiyonu başlatın
- Final substrat konsantrasyonu 50 µM olacak şekilde her kuyucuğa 25 µL peptid substrat ekleyin (final reaksiyon hacmi: 150 µL).
- Substrat eklemesinden hemen sonra floresans veri toplama işlemini başlatın.
NOT: Başlangıç reaksiyon kinetiğinin doğru ölçülmesini sağlamak için substrat eklendikten hemen sonra veri toplamaya başlayın.
- Floresans verilerini toplayın
- Önceden tanımlanmış veri toplama ayarlarını kullanarak 60 dk boyunca kesintisiz olarak floresans kaydı yapın.
Sonuçlar
Zamana bağlı floresan rezonans enerji transferi (TR-FRET) analizinin başarılı bir şekilde uygulanması, enzim-substrat oranının optimizasyonunu gerektirir. Protokolde açıklandığı üzere, bu durum her iki bileşenin titrasyonu ile gerçekleştirilebilir. Bu çalışmada, 15,6 ile 500 nM arasındaki enzim konsantrasyonları, 12,5 ile 50 µM arasındaki substrat konsantrasyonları ile kombinasyon halinde test edilmiştir. Substrat veya enzimin eksik olduğu kontrol reaksiyonları da çalışmaya dahil edilmiştir. Ayrı bir deneyde, Michaelis-Menten sabiti (KM) 29,2 ± 6,1 µM olarak belirlenmiştir (Ek Şekil 1).
Sonuçlar, enzim konsantrasyonunun öncelikle substrat dönüşümünü belirlediğini, substrat konsantrasyonunun ise temel olarak floresan sinyal yoğunluğunu etkilediğini göstermektedir. Artan substrat konsantrasyonları, daha yüksek başlangıç floresan sinyalleri (t = 0) ile sonuçlanmıştır. Örneğin, Şekil 2A'da taban floresansı yaklaşık 400 ile 500 RFU arasında değişirken, daha düşük substrat konsantrasyonları daha düşük taban floresans değerleri üretmiştir (Şekil 2B,C). Substrat yokluğunda (Şekil 2D), tipik olarak 20 RFU'nun altında olan yalnızca arka plan floresansı tespit edilmiştir.
Enzim konsantrasyonlarının artırılması, daha fazla substrat döngüsüyle ve iyileştirilmiş sinyal-gürültü oranlarıyla sonuçlanmıştır (Şekil 2A). En yüksek enzim konsantrasyonunda reaksiyon, yaklaşık 50 dk sonra bir platoya yaklaşmış olup bu durum, substrat döngüsünün neredeyse tamamlandığını göstermiştir. Platoya, daha düşük substrat konsantrasyonlarında daha erken, daha yüksek substrat konsantrasyonlarında ise daha geç ulaşılmıştır. Buna karşılık, daha düşük enzim konsantrasyonları 60 dk'lık ölçüm süresi içinde doygunluğa ulaşmamış ve floresansta yaklaşık lineer bir artış sürdürmüştür.
Bu gözlemlere dayanarak, optimal analiz koşulları şu kriterleri karşılamalıdır: (1) substratsız kontrolde minimum arka plan floresansı; (2) enzimsiz kontrolde substrat dönüşümü olmaksızın stabil temel floresans; (3) kantitatif analiz için yeterli sinyal-gürültü oranı sağlayan bir enzim-substrat oranı; ve (4) ölçüm süresinin sonunda platoya ulaşan floresans sinyalleri. Bu kriterlere dayanarak, sonraki deneyler için 500 nM enzim konsantrasyonu ve 50 µM substrat konsantrasyonu seçilmiştir.
Florojenik substratı daha ayrıntılı karakterize etmek için, sekiz substrat konsantrasyonu (0.39–50 µM) ve sabit bir enzim konsantrasyonu (15.9 nM) kullanılarak standart assay koşulları altında enzim kinetik parametreleri belirlenmiştir. Floresans ilerleme eğrilerinden elde edilen başlangıç reaksiyon hızları Michaelis–Menten denklemine uydurulmuştur (Ek Şekil 1A,B). MI-2822 substratı 29.2 ± 6.1 µM'lik bir KM ve 91.8 ± 14.2 RFU/s'lik bir Vmax sergilemiştir (n = 7). 2-amino-N-(3-aminopropyl) benzamid ile oluşturulan bir kalibrasyon eğrisi kullanılarak (Ek Şekil 1C), kcat değeri 0.62 s⁻1 olarak hesaplanmış olup, bu değer daha önce tanımlanmış ACC tabanlı florojenik substratlar için rapor edilen değerden yaklaşık 30 kat daha yüksek olan 2.12 × 10⁴ s⁻1 M⁻1 katalitik verimliliğe (kcat/KM) karşılık gelmektedir. Bu kinetik veriler, SARS-CoV-2 Mpro tarafından verimli bir substrat tanınmasına işaret etmekte ve MI-2822'nin hassas floresans tabanlı enzimatik assayler için uygunluğunu desteklemektedir.
Analiz, 500 nM Mpro ve 50 µM substrat kullanılarak gerçekleştirilmiştir (Şekil 3 ve Şekil 4). Katalitik bölgeyi hedefleyen bir referans inhibitör olarak Nirmatrelvir ("inhibitör") kullanılmıştır. Paralel olarak, katalitik yarığın dışına bağlanan Mpro-hedefli bir PROTAC ("PROTAC") ve E3 ligaz-bağlanma grubundan yoksun ilgili bir ligand ("ligand") değerlendirilmiştir. Doza bağlı etkileri belirlemek amacıyla tüm bileşikler üç farklı konsantrasyonda test edilmiştir.
Çözücü etkilerini kontrol etmek için tüm reaksiyonlar sabit bir DMSO konsantrasyonu (0.1%) içeriyordu. Ek kontroller arasında yalnızca tampon içeren bir kontrol ve enzim içermeyen (mock) bir kontrol yer alıyordu.
İnhibitörün, substrat döngüsünü doz bağımlı bir şekilde azaltması beklenmektedir. Buna karşılık, katalitik bölgenin dışına bağlanan PROTAC'ın, hücresiz koşullar altında enzimatik aktiviteyi önemli ölçüde etkilemesi beklenmemektedir. Benzer şekilde, ligand kontrolünün substrat döngüsü üzerinde az veya hiç etkisi olmaması beklenmektedir. Mock kontrolü, deney boyunca bazal floresan değerini korumalıdır.
Beklentilerle uyumlu olarak, DMSO'nun tampon kontrolüne kıyasla enzim aktivitesi üzerinde ölçülebilir bir etkisi olmamıştır (Şekil 3A–C, siyah). Benzer şekilde, mock kontrol deney boyunca stabil bir bazal floresan sinyalini korumuştur (Şekil 3A–C, macenta).
İnhibitör, Mpro aktivitesini doz bağımlı olarak inhibe etmiştir (Şekil 3A, kırmızı). 10 µM konsantrasyonda substrat döngüsü belirgin şekilde azalırken, daha düşük konsantrasyonlar kademeli olarak daha zayıf inhibisyon oluşturmuştur. Buna karşılık, hem PROTAC (Şekil 3B, mavi) hem de ligand (Şekil 3C, yeşil) substrat döngüsünde yalnızca küçük azalmalar meydana getirmiştir. Her iki bileşik de aynı savaş başlığını (warhead) paylaştığı için, benzer davranışları bağlanma özellikleriyle uyumludur. Önemli olan nokta, test edilen koşullar altında her iki bileşiğin de enzimatik aktiviteyi anlamlı düzeyde inhibe etmemiş olmasıdır.
Bu bulgular, degradasyona dayalı antiviral aktivitenin yorumlanması açısından önemlidir. PROTAC, aktif bölge inhibitörünün aksine, Mpro enzimatik aktivitesinde minimal inhibisyon sergilediğinden, hücre tabanlı çalışmalarda gözlemlenen viral replikasyondaki herhangi bir azalma, doğrudan enzimatik inhibisyondan ziyade öncelikle protein degradasyonuna bağlanabilir. Bu mekanistik ayrım, antiviral aktivitenin hedeflenen degradasyon mekanizması aracılığıyla gerçekleştiğinin doğrulanması için esastır.
Reaksiyon kinetiği, kümülatif substrat dönüşümünün (ΣRFU) kantitatif bir ölçüsünü sağlayan floresans-zaman eğrisi altındaki alan (AUC; Şekil 4) hesaplanarak daha ayrıntılı olarak değerlendirilmiştir. AUC, kaydedilen tüm zaman noktalarındaki RFU değerlerinin toplamı olarak hesaplanmıştır.
Bu analiz, yalnızca en yüksek inhibitör konsantrasyonunun substrat döngüsünü anlamlı düzeyde azalttığını doğrulamıştır. PROTAC yalnızca düşük düzeyde doza bağlı bir etki oluştururken, ligandın ölçülebilir bir etkisi olmamıştır. DMSO ve tampon kontrolleri karşılaştırılabilir sonuçlar vermiştir. Mock kontrolü, büyük olasılıkla florofor fotobeyazlaması nedeniyle zamanla floresansta hafif bir azalma göstermiştir.
Potansiyel analiz kısıtlamalarını göstermek için, başarısız veya suboptimal reaksiyonların temsili örnekleri Şekil 5'te sunulmuştur. Güvenilir analiz performansı, sonuçlar yorumlanmadan önce doğrulanması gereken enzim preparasyonunun hem saflığına hem de bütünlüğüne bağlıdır.
Şekil 5A, enzim saflığının yetersiz olduğu veya aktif enzim konsantrasyonunun substrat dönüşümünü desteklemek için çok düşük olduğu başarısız bir reaksiyonu göstermektedir. Başlangıç floresan baz çizgisi (t = 0), muhtemelen hatalı substrat hazırlama veya enzim hazırlığındaki arka plan floresansına katkıda bulunan safsızlıklar nedeniyle 1,000 RFU değerini aşmıştır. Ayrıca, hiçbir deneysel koşul altında substrat dönüşümü gözlemlenmemiştir; bu durum, ya aktif enzimin yetersiz olduğunu ya da enzimatik aktiviteyi engelleyen bir kontaminasyon olduğunu göstermektedir.
Enzim preparasyonunun arka plan floresansına katkıda bulunup bulunmadığını belirlemek için substratsız bir kontrol eklenebilir. İdeal olarak, bu sinyal minimum düzeyde kalmalıdır. Optimize edilmiş analizde (Şekil 5B), arka plan floresansı 20 RFU'nun altında kalmış ve tüm enzim konsantrasyonlarında tutarlılık göstermiştir; bu durum, enzim preparasyonunun arka plan sinyaline katkısının ihmal edilebilir düzeyde olduğunu göstermektedir. Enzimatik aktivite ile etkileşim tamamen dışlanamasa da, yükselmiş bazal floresansa enzim preparasyonunun önemli bir katkıda bulunduğu ihtimali elenebilir.
Substrat hazırlama, assay performansının bir diğer kritik belirleyicisidir. Bu çalışmada, tutarlı assay koşullarını sürdürmek için peptit substrat protein tamponu içerisinde çözünmüştür. Assay optimizasyonu sırasında, substrat çözünürlüğü iki farklı protein tamponunda ve distile suda değerlendirilmiştir. Substratın distile suda çözünmesi, çözünürlüğünü azaltmış ve peptit agregasyonunu teşvik etmiştir. Bu agregatlar assay sırasında kademeli olarak çözündükçe, floresansta ani artışlara neden olmuş ve bu durum efektif substrat konsantrasyonlarının yanlış tahmin edilmesine yol açmıştır (Şekil 5C, kırmızı). Bu nedenle, enzim aktivitesini korurken substratın tam çözünürlüğünü sağlayan bir çözücü kullanın.
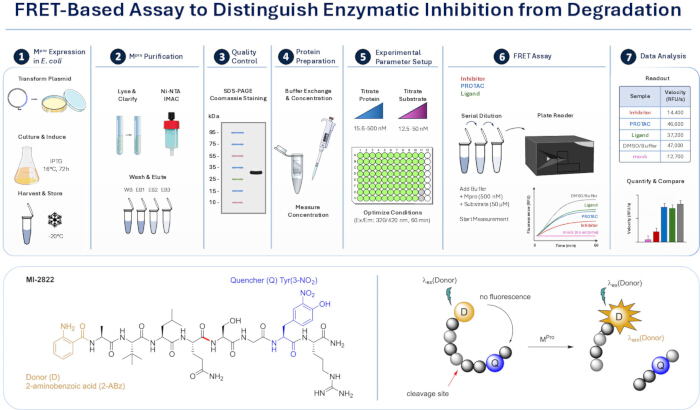
Şekil 1: FRET tabanlı deneyin genel görünümü ve analiz prensibi. Üst panel; E. coli'de rekombinant Mpro ekspresyonu, immobilize metal afinite kromatografisi ile saflaştırma, kalite kontrol, protein hazırlama ve analiz koşullarının optimizasyonunu, ardından FRET analizi ve veri analizini içeren deneysel iş akışını göstermektedir. Alt panel analiz prensibini tasvir etmektedir: sönümlenmiş florojenik bir peptid substratı Mpro tarafından kesilerek florofor ve sönümleyicinin ayrılmasına ve buna bağlı olarak floresans sinyalinde artışa neden olur. Bu düzenek, enzimatik aktivitenin kinetik izlemesine ve inhibitör, PROTAC ve ligand ile işlem görmüş koşulların karşılaştırılmasına olanak tanır. Kısaltmalar: Mpro = ana proteaz, E. coli = Escherichia coli, FRET = floresans rezonans enerji transferi, PROTAC = proteoliz hedefli kimera. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
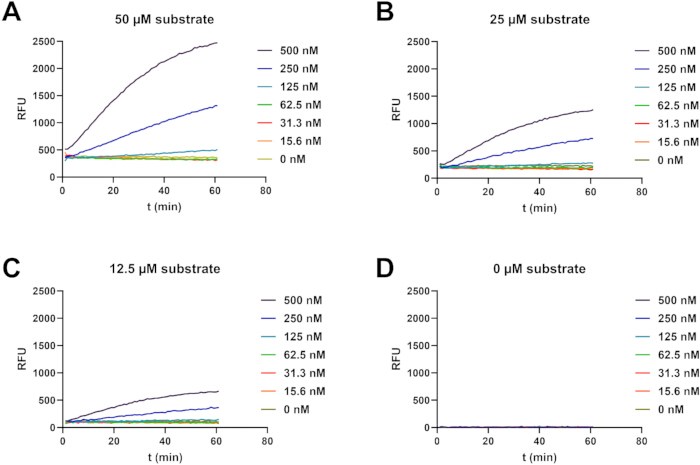
Şekil 2: Protein ve substrat titrasyonu. Toplam 150 µL'lik bir reaksiyon hacminde, saflaştırılmış Mpro (15.6–500 nM) seri dilüsyonu; (A) 50 µM, (B) 25 µM, (C) 12.5 µM substrat veya (D) tampon (substratsız kontrol) ile birleştirilmiştir. Reaksiyonlar, siyah düz tabanlı 96 kuyucuklu plakalarda gerçekleştirilmiş ve çok modlu bir mikroplaka okuyucuda izlenmiştir. Floresans, 60 dakika boyunca her 60 s'de bir kaydedilmiştir (λex 320 nm, λem 420 nm). RFU zamana karşı grafiğe dökülmüştür. Kısaltmalar: Mpro = ana proteaz, λex = eksitasyon dalga boyu, λem = emisyon dalga boyu, RFU = bağıl floresans birimleri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
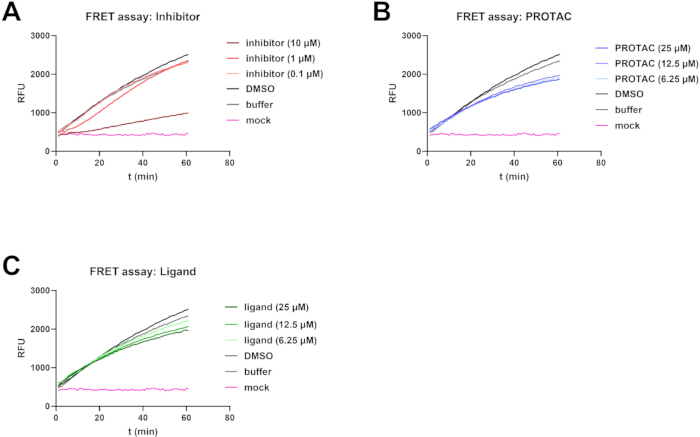
Şekil 3: Mpro inhibitörü, PROTAC ve ligand varlığında TR-FRET. 150 µL toplam reaksiyon hacminde, 500 nM saflaştırılmış Mpro, (A) aktif bölge inhibitörü nirmatrelvir, (B) Mpro hedefli bir PROTAC veya (C) E3 ligaz bağlayıcı grubu içermeyen karşılık gelen ligandın seri dilüsyonları varlığında 50 µM substrat ile inkübe edilmiştir. Reaksiyonlar, siyah düz tabanlı 96 kuyucuklu plaklarda gerçekleştirilmiş ve çok modlu bir mikroplaka okuyucuda izlenmiştir. Floresan, 60 dk boyunca her 60 s'de bir kaydedilmiştir (λex 320 nm, λem 420 nm). RFU değerleri zamana göre grafiğe dökülmüştür. Kısaltmalar: Mpro = ana proteaz, PROTAC = proteoliz hedefli kimera, λex = eksitasyon dalga boyu, λem = emisyon dalga boyu. RFU = bağıl floresan birimleri. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
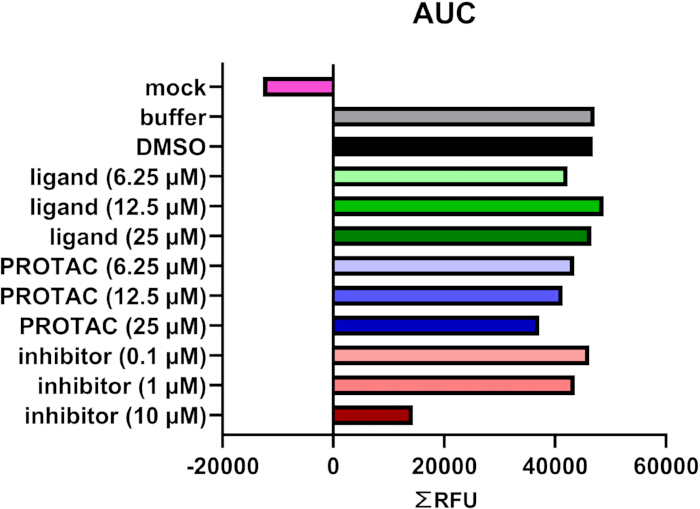
Şekil 4: TR-FRET analizinin entegre kinetik analizi. AUC'den (Şekil 3'te gösterilmiştir) türetilen entegre kinetikler, 60 dk boyunca tüm RFU'ları entegre eden ΣRFU olarak ifade edilir. AUC değerleri substrat döngüsünü nicelleştirir ve inhibitör, PROTAC ve ligand ile işlem görmüş koşulların doğrudan karşılaştırılmasına olanak tanır. Kısaltmalar: AUC = eğri altındaki alan, RFU = bağıl floresan birimleri, PROTAC = proteoliz hedefleyici kimera. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
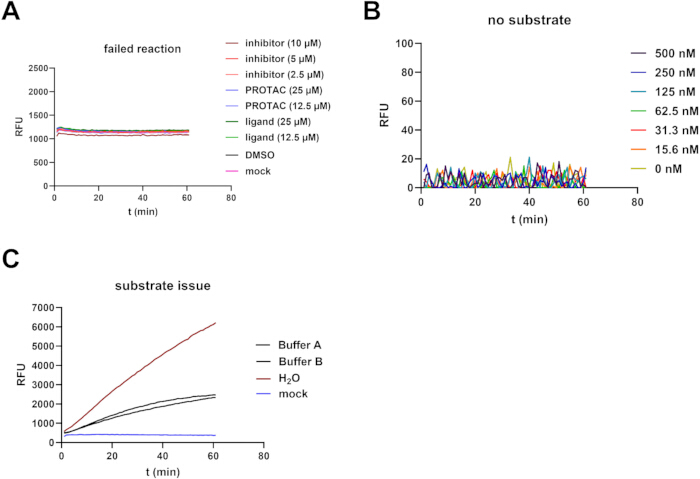
Şekil 5: Başarısız reaksiyonların ve kontrol deneylerinin örnek sonuçları. (A) İnhibitör, PROTAC ve ligandın seri dilüsyonlarını içeren, Şekil 3'te açıklandığı şekilde gerçekleştirilen TR-FRET analizi. Veriler, yüksek bazal floresans ve tüm koşullarda substrat dönüşümünün yokluğu ile karakterize edilen başarısız bir reaksiyonu göstermektedir. (B) Şekil 2D'de açıklandığı şekilde gerçekleştirilen substratsız kontrol. Arka plan floresansı, enzim konsantrasyonları boyunca düşük (<20 RFU) ve sabit kalmaktadır. (C) Farklı çözücülerde (protein tamponları A ve B veya dH₂O) çözülmüş substrat kullanılarak Şekil 3'te açıklandığı şekilde gerçekleştirilen TR-FRET analizi. dH₂O içindeki düşük çözünürlük, peptid agregasyonuna yol açarak gecikmiş substrat çözünmesi ve hatalı efektif konsantrasyonlar nedeniyle floresansta düzensiz artışlara neden olmaktadır. Kısaltmalar: TR-FRET = zaman çözünürlüklü floresan rezonans enerji transferi, PROTAC = proteoliz hedefli kimera. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
Ek Şekil 1: MI-2822 substratı kullanılarak SARS-CoV-2 ana proteazının (deneyde 15.9 nM) enzim kinetiği analizi. (A) 50 µM (siyah), 25 µM (açık yeşil), 12.5 µM (mavi), 6.25 µM (pembe), 3.13 µM (koyu yeşil), 1.56 µM (koyu mavi), 0.78 µM (menekşe) ve 0.39 µM (mor) substrat konsantrasyonlarındaki ilerleme eğrileri. (B) Hızların Michaelis-Menten denklemine uydurulması sonucu 29.2 ± 6.1 µM'lik bir KM ve 91.8 ± 14.2 RFU/s'lik bir Vmax değeri elde edilmiştir (n = 7). (C) 0.62 s-1 kcat ve 2.12 × 10⁴ s-1 M-1 kcat/KM değerini hesaplamak için 2-amino-N-(3-aminopropyl) benzamide floroforu ile bir kalibrasyon eğrisi kullanılmıştır.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Dosya 1: 2-amino-N-(3-aminopropil) benzamid sentezi. Enzim kinetik analizinde floresans kalibrasyonu için kullanılan florofor 2-aminobenzamid'in (2-Abz) suda çözünür amid türevi olan 2-amino-N-(3-aminopropil) benzamid'in ayrıntılı sentetik prosedürü ve analitik karakterizasyonu.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu çalışmada, inhibitörlerin, proteoliz hedefli kimeraların (PROTAC'lar) ve bunlara karşılık gelen ligandların varlığında SARS-CoV-2 Mpro enzim aktivitesini değerlendirmek için zaman çözünürlüklü floresan rezonans enerji transferine (TR-FRET) dayalı bir analiz sunuyoruz. Bu analiz, bir PROTAC'ın yalnızca protein degradasyonundan kaynaklanan etkileri ile hedef enzimin katalitik aktivitesinin doğrudan inhibisyonundan kaynaklanan etkileri arasında fonksiyonel bir ayrım yapmak amacıyla geliştirilmiştir. Florojenik bir peptit substrat kullanarak, katalitik yarığın dışına bağlanan Mpro hedefli bir PROTAC'ın enzim aktivitesi üzerinde yalnızca küçük bir etkisi olduğunu, buna karşın aktif bölge inhibitörü nirmatrelvirin substrat döngüsünü belirgin şekilde baskıladığını gösteriyoruz.
Güvenilir analiz performansı; rekombinant enzimin saflığı ve aktivitesi, peptit substratın tam çözünürlüğü ve doğru hazırlanması ile enzim ve substrat konsantrasyonlarının dikkatli optimizasyonu dahil olmak üzere birkaç kritik faktöre bağlıdır. Suboptimal enzim kalitesi veya hatalı substrat konsantrasyonları, arka plan floresanını artırabilir veya tespit edilebilir substrat döngüsünü azaltabilir. Ayrıca, tutarlı ve tekrarlanabilir kinetik ölçümler sağlamak için enzim aktivite ölçümleri substrat eklendikten hemen sonra başlamalı ve plaka okuyucu analiz başlatılmadan önce sıcaklık dengesine getirilmelidir.
Deney, istenilen dinamik aralığı elde etmek için enzim ve substrat konsantrasyonları optimize edilerek farklı proteazlara15,16,17,18,19 veya deneysel konfigürasyonlara kolayca uyarlanabilir. Enzimsiz, substratsız ve solvent kontrollerini içeren uygun kontroller, analizle ilgili artefaktların tanımlanması için temel teşkil eder. Sorun giderme süreci; arka plan floresansı değerlendirilerek, enzim bütünlüğü ve aktivitesi doğrulanarak ve gerektiğinde alternatif substrat solventleri test edilerek, teknik artefaktların enzimatik aktivite üzerindeki gerçek etkilerden ayırt edilmesine odaklanmalıdır. Özellikle, substratın yetersiz çözünürlüğü, reaksiyon sırasında substrat çözünmesinin gecikmesi nedeniyle agregasyona ve floresansta düzensiz artışlara yol açabilir.
Bu analiz biyokimyasal, hücresiz bir sistemde gerçekleştirildiği için üçüncül kompleks oluşumu, ubikitinasyon veya proteazomal yıkım gibi yıkıma bağımlı süreçleri kapsamaz. Sonuç olarak, yıkım verimliliğini değerlendirmeden, doğrudan enzimatik inhibisyonun katkısını spesifik olarak ölçer. Ek olarak, intrinsik floresans, floresans sönümlenmesi veya substrat parçalanmasına yönelik girişimler dahil olmak üzere bileşik kaynaklı artefaktlar, analiz okumasını etkileyebilir. Bu potansiyel karıştırıcı faktörler; yalnızca bileşik, enzim içermeyen, substrat içermeyen ve çözücü kontrollerini içeren uygun kontrol deneyleri eklenerek ele alınmalıdır. Sonuçların doğru yorumlanması, ayrıca analiz koşullarının enzim kinetiğinin doğrusal aralığında tutulmasını gerektirir.
Hücre tabanlı degradasyon analizleriyle karşılaştırıldığında, sunulan TR-FRET analizi, iyi tanımlanmış biyokimyasal koşullar altında enzimatik aktivitenin doğrudan ve kantitatif bir ölçümünü sağlar. PROTAC'ların antiviral aktivitesini değerlendiren hüsel analizler; hedef degradasyonu ile viral poliprotein işlemenin bozulması, viral replikasyonun azalması ve viral protein ekspresyonunun değişmesi gibi alt akış etkileri dahil olmak üzere birden fazla biyolojik süreci bütünleştirir. Bu analizler, genel antiviral etkinlik hakkında değerli bilgiler sağlamasına rağmen, gözlemlenen etkilerin enzimatik aktivitenin doğrudan inhibisyonundan mı yoksa hedef proteinin degradasyonundan mı kaynaklandığını genellikle ayırt edemezler10,12,13,14. Buna karşılık, TR-FRET analizi, enzimatik düzeyde kesin bir mekanistik ayrıştırmaya olanak tanır ve bu nedenle yerleşik biyokimyasal ve hücresel yaklaşımlara önemli bir tamamlayıcı olarak hizmet eder.
Bu analiz, PROTAC'ların ve enzimatik olarak aktif proteinleri hedefleyen diğer bifonksiyonel moleküllerin geliştirilmesi ve optimizasyonu için özellikle değerlidir. Birçok antiviral degrader, aktif bölge inhibitörlerinden türetilmiş harp başlıkları içererek, doğrudan enzimatik inhibisyonu hedeflenmiş protein degradasyonu ile birleştirir10,12,13,14. Ancak, tüm ligand iskeletleri doğal inhibitör aktiviteye sahip değildir ve linker eklenmesi gibi yapısal modifikasyonlar bağlanma afinitesini veya bağlanma modunu değiştirebilir20. Bu nedenle sunulan analiz, doğrudan enzimatik inhibisyonun bir PROTAC'ın toplam antiviral aktivitesine olan katkısının nicel olarak değerlendirilmesini sağlar. Yöntem, SARS-CoV-2 Mpro dışında, diğer viral proteazlar ve enzimatik hedefler için de yaygın olarak uygulanabilir ve mekanistik profilleri iyi tanımlanmış degraderların rasyonel gelişimini kolaylaştırabilir. Önemli olan, incelenen PROTAC'ın in vitro ortamda Mpro aktivitesini yalnızca minimum düzeyde doğrudan inhibe ettiğini göstererek, bu TR-FRET analizinin, sonraki hücre tabanlı analizlerde gözlemlenen antiviral etkilerin öncelikle doğrudan enzimatik inhibisyondan ziyade protein degradasyonuna bağlanabileceğine dair mekanistik bir doğrulama sağlamasıdır.
Özetle, sunulan TR-FRET analizi, doğrudan enzim inhibisyonunu degradasyonla ilişkili etkilerden ayırmak için sağlam, hassas ve çok yönlü bir platform sağlar. Tamamlayıcı hücresel analizlerle entegre edildiğinde, PROTAC etki mekanizmalarının kapsamlı karakterizasyonuna olanak tanır ve yeni nesil antiviral degraderların rasyonel geliştirilmesini destekler.
Açıklamalar
Yazarlar beyan edilecek herhangi bir çıkar çatışmasına sahip değildir.
Teşekkürler
Bu çalışmada kullanılan bileşiklerin sentezindeki destekleri için Laura Bunt, Justus Happe, Dominique Hagene ve Lukas Plamper'a teşekkür ederiz. Ayrıca, bu analizin kurulması sırasındaki tavsiyeleri için Konstantin Bloch ve Miriam Ruth Heindl'e teşekkürlerimizi sunarız. Ek olarak, finansman sağladıkları için Jürgen Manchot Vakfı'na, LOEWE Center DRUID'e ve Uniscientia Vakfı'na teşekkür ederiz.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Akrilamid (Rotiphorese® Gel 30) | Carl Roth | 3029.1 | SDS-PAGE bileşeni |
| Amonyum persülfat (APS) | Biorad | 1610700 | SDS-PAGE bileşeni |
| Bakteriyel suş BL21 Rosetta2 | La Jolla Institute for Immunology, San Diego, USA | N/A | ortaklar tarafından sağlanmıştır |
| BioTek Synergy H1 Multimode Okuyucu | Agilent Technologies | Synergy H1 | TR-FRET okuması için |
| Siyah 96 kuyucuklu FluoroNunc MaxiSorp plakaları | Thermo-Fisher Scientific | 437111 | Siyah plakaların kullanıldığından emin olun |
| Bromfenol mavisi | Sigma-Aldrich | 1.08122 | Numune tamponu bileşeni |
| Santrifüj 5430-R (masaüstü) | Eppendorf | 5430-R | Soğutma fonksiyonlu |
| Santrifüj Avanti J-25 | Beckman Coulter | 6594 | Yüksek hızlı santrifüj |
| Santrifüj Avanti J-26 XP | Beckman Coulter | JXN-26 | Yüksek hızlı santrifüj |
| Dimetilsülfoksit (DMSO) | Carl Roth | A994.1 | Çözücü |
| Sodyum hidrojen fosfat (Na2HPO4) | Carl Roth | X987.2 | Tampon bileşeni |
| Etanol (ROTIPURAN® ≥ 99,8 %, p.a.) | Carl Roth | 9065.1 | IMAC için |
| Gliserol | Carl Roth | 6967.1 | Bakteriyel stok için |
| Hei-FLOW Core 120 peristaltik pompa | Heidolph | 523-50010-00 | IMAC için |
| Heraeus Multifuge 3S-R | Heraeus | 2395 | Soğutma fonksiyonu yok |
| HisTrap® FF kaba histidin etiketli protein saflaştırma kolonları (5 mL) | Cytiva | 17528601 | IMAC için |
| İmidazol | Carl Roth | 3899.3 | IMAC sırasında protein elüsyonu için |
| InoLab pH/ION 7320 BNC pH metre | WTW | 1GA330 | pH titrasyonu için |
| İzopropil-β-D-tiyogalaktopiranozid (IPTG) | Carl Roth | CN08.1 | Ekspresyon indüksiyonu için |
| Kanamisin sülfat | Sigma-Aldrich | PHR1487 | Antibiyotik |
| Manyetik karıştırıcı (Isıtmalı) | Heidolph | 7402 | Tampon üretimi için |
| Merkaptoetanol | Sigma-Aldrich | M6250-10ML | Numune tamponu bileşeni |
| MultiScreen® 96 kuyucuklu plaka | MilliporeSigma | MSSBNFX40 | Dilüsyonlar için |
| N,N,N',N'-tetrametiletilendiamin (TEMED) | Fisher Scientific | 11424214 | SDS-PAGE bileşeni |
| Nanodrop ND1000 fotometre | Peqlab | 7533 | Protein konsantrasyonu tayini |
| pET28a(+) plazmid vektörü | Addgene | 69864-3 | Ekspresyon vektörü |
| Potasyum klorür (KCl) | Carl Roth | 1LCY.1 | Tampon bileşeni |
| Potasyum dihidrojen fosfat (KH2PO4) | Carl Roth | 3904.1 | Tampon bileşeni |
| Protein Detective - ultra hızlı Coomassie protein boyası (1 L) | BIOZOL | BZL-PD1 | Hızlı ve kolay protein boyama için |
| Rotor JA 25.50 ve JLA 8.1000 | Beckmann Coulter | 363055, 363688 | Yüksek hızlı rotorlar |
| SenTix® 81 pH elektrodu | WTW | 103642 | pH titrasyonu için |
| Sodyum klorür (NaCl) | Carl Roth | 3957.1 | Tampon ve ortam bileşeni |
| Sodyum dodesil sülfat (SDS) | Carl Roth | 0183.1 | SDS-PAGE ve numune tamponu bileşeni |
| Sonifier Branson Ultrasonics S-450 | BANDELIN electronic | 10656933 | Sonikasyon için |
| SP standart (wt 1.6 mm) tek kanallı pompa başlığı | Heidolph | 523-43010-00 | IMAC için |
| Spark Multimode Mikroplaka Okuyucu | Tecan Group | N/A | Enzim kinetiği analizi |
| Tris | Carl Roth | 4855.2 | Tampon bileşeni |
| Triton-X100 | Sigma-Aldrich | X100-100ML | Tampon bileşeni |
| Tripton/Pepton | Carl Roth | 6681.3 | Ortam bileşeni |
| Maya özütü | Carl Roth | 2363.2 | Ortam bileşeni |
| Z-Competent E. coli Transformasyon Kiti® ve Tampon Seti | Zymo Research | T3001 | Bakteriyel transformasyon için |
Kaynaklar
- Samarasinghe KTG, Crews CM. Targeted protein degradation: A promise for undruggable proteins. Cell Chem Biol. 2021;28(7):934-951.
- Dong G, Ding Y, He S, Sheng C. Molecular glues for targeted protein degradation: From serendipity to rational discovery. J Med Chem. 2021;64(15):10606-10620.
- Buetow L, Huang DT. Structural insights into the catalysis and regulation of E3 ubiquitin ligases. Nat Rev Mol Cell Biol. 2016;17(10):626-642.
- Li W, et al. Genome-wide and functional annotation of human E3 ubiquitin ligases identifies MULAN, a mitochondrial E3 that regulates the organelle's dynamics and signaling. PLoS One. 2008;3(1).
- Békés M, Langley DR, Crews CM. PROTAC targeted protein degraders: The past is prologue. Nat Rev Drug Discov. 2022;21(3):181-200.
- Crowe C, et al. Mechanism of degrader-targeted protein ubiquitinability. Sci Adv. 2024;10(41).
- Fischer ES, et al. Structure of the DDB1-CRBN E3 ubiquitin ligase in complex with thalidomide. Nature. 2014;512(7512):49-53.
- Teng M, Gray NS. The rise of degrader drugs. Cell Chem Biol. 2023;30(8):864-878.
- Burke MR, Smith AR, Zheng G. Overcoming cancer drug resistance utilizing PROTAC technology. Front Cell Dev Biol. 2022;10.
- de Wispelaere M, et al. Small molecule degraders of the hepatitis C virus protease reduce susceptibility to resistance mutations. Nat Commun. 2019;10(1):3468.
- Paiva SL, Crews CM. Targeted protein degradation: Elements of PROTAC design. Curr Opin Chem Biol. 2019;50:111-119.
- Pan B, et al. Targeted protein degraders of SARS-CoV-2 Mpro are more active than enzymatic inhibition alone with activity against nirmatrelvir-resistant virus. Commun Med. 2025;5(1):140.
- Alugubelli YR, et al. Discovery of first-in-class PROTAC degraders of SARS-CoV-2 main protease. J Med Chem. 2024;67(8):6495-6507.
- Xu Z, et al. Discovery of oseltamivir-based novel PROTACs as degraders targeting neuraminidase to combat H1N1 influenza virus. Cell Insight. 2022;1(3):100030.
- Schwerdtner M, et al. Unveiling the role of TMPRSS2 in the proteolytic activation of pandemic and zoonotic influenza viruses and coronaviruses in human airway cells. Viruses. 2024;16(11):1798.
- Steinmetzer T, Hardes K. The antiviral potential of host protease inhibitors. In: Böttcher-Friebertshäuser E, Garten W, Klenk HD, editors. Activation of Viruses by Host Proteases. Springer; 2018. p. 279-325.
- Böttcher-Friebertshäuser E, et al. Cleavage of influenza virus hemagglutinin by airway proteases TMPRSS2 and HAT differs in subcellular localization and susceptibility to protease inhibitors. J Virol. 2010;84(11):5605-5614.
- Lam van TV, Ivanova T, Lindberg I, Böttcher-Friebertshäuser E, et al. Design, synthesis, and characterization of novel fluorogenic substrates of the proprotein convertases furin, PC1/3, PC2, PC5/6, and PC7. Anal Biochem. 2022;655:114836.
- Hardes K, Hammamy MZ, Steinmetzer T. Synthesis and characterization of novel fluorogenic substrates of coagulation factor XIII-A. Anal Biochem. 2013;442(2):223-230.
- Frost A, O'Connor S, Ciulli A. Allosteric PROTACs: Expanding the horizon of targeted protein degradation. J Am Chem Soc. 2026;148(3):2823-2837.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında