miR-488-3p, RA için yeni, non-invaziv bir tanısal belirteç olarak hizmet edebilir. miR-488-3p, ROCK1 aracılığıyla sinoviyositlerin biyolojik fonksiyonunu modüle eder. RA hastalarında hastalık şiddeti ile anlamlı bir negatif korelasyon sergilemiştir.
Araştırma makalesi
Romatoid Artritli Hastalarda Mir-488-3p'nin Serum Ekspresyonu Non-İnvaziv Bir Tanısal Biyobelirteç Olarak Hizmet Etmektedir
Bu makalede
Özet
Özet
Mevcut biyobelirteçlerin sınırlılıkları nedeniyle romatoid artrit (RA) tanısı koymak zor olmaya devam etmektedir. Bu çalışmanın amacı, serumdaki miR-488-3p'nin RA için bir biyobelirteç potansiyelini araştırmak ve potansiyel etki mekanizmasını ortaya çıkarmaktır. Çalışmaya 135 RA hastası, 130 osteoartrit (OA) hastası ve 125 sağlıklı kontrol dahil edilmiştir. miR-488-3p ekspresyon seviyeleri RT-qPCR ile incelenmiştir. Etki mekanizması, fonksiyonel testler (CCK-8, akış sitometrisi, ELISA) ve hedef doğrulama deneyleri (lusiferaz raporlaştırıcı gen, RIP) ile analiz edilmiştir. Serum miR-488-3p ekspresyon seviyeleri, RA hastalarında osteoartrit (OA) hastalarına ve sağlıklı kontrollere göre anlamlı derecede daha düşük bulunmuştur (p < 0.001). ROC eğrisi analizi, miR-488-3p'nin RA'yı sağlıklı kontrollerden ve OA hastalarından ayırt etmede yüksek tanısal doğruluğa sahip olduğunu göstermiştir. miR-488-3p; eritrosit sedimentasyon hızı (ESR), C-reaktif protein (CRP), romatoid faktör (RF) ve DAS28 skorları ile negatif korelasyon göstermiştir. Fonksiyonel doğrulama, miR-488-3p'nin aşırı ekspresyonunun sinovyositlerin proliferasyonunu ve inflamatuar yanıtını inhibe ederken apoptozu indüklediğini ortaya koymuştur. Mekanistik çalışmalar, miR-488-3p'nin, koruyucu etkilerine aracılık eden Rho-ilişkili sarmal-bobin içeren protein kinaz 1'i (ROCK1) doğrudan hedefleyebildiğini göstermiştir. Serum miR-488-3p, RA için yeni, non-invaziv bir tanısal belirteç olma vaadi taşımakta ve sinovyositi hasardan korumaktadır.
Giriş
Romatoid artrit (RA); sinovyal inflamasyon, eklem erozyonu ve yıkımı ile karakterize yaygın bir otoimmün hastalıktır1,2. RA'nın küresel prevalansı yaklaşık %0,5–1'dir3 ve bu durum hastaların yaşam kalitesini ve çalışma kapasitesini ciddi şekilde etkiler. Hastalık sinsi bir başlangıca sahiptir ve erken semptomlar genellikle atipiktir; bu nedenle kolayca yanlış teşhis edilebilir veya gözden kaçabilir4. Hastalık ilerledikçe eklem deformitesine, fonksiyon kaybına yol açabilir ve hatta kardiyovasküler hastalıklar gibi komplikasyonların riskini artırarak5 hastalar, aileleri ve sağlık sistemleri üzerinde önemli bir yük oluşturabilir.
Günümüzde, RA tanısı için klinik semptomların, bulguların, laboratuvar testlerinin ve görüntüleme değerlendirmesinin bir kombinasyonu gereklidir6. Yaygın olarak kullanılan laboratuvar göstergeleri arasında, sistemik inflamasyonun spesifik olmayan belirteçleri olan eritrosit sedimentasyon hızı (ESR) ve C-reaktif protein (CRP) ile RA için önemli serolojik biyobelirteçler olan romatoid faktör (RF) ve anti-siklik sitrülline peptit (anti-CCP) antikorları yer almaktadır7,8. Ancak, bu geleneksel biyobelirteçlerin sınırlamaları vardır: RF, bazı sağlıklı kişilerde ve diğer otoimmün hastalıkları olan hastalarda pozitif olabilir (yaklaşık %5 yanlış pozitiflik oranı); anti-CCP, yüksek spesifiteye sahip olsa da (>%95), hastalığın erken evrelerinde sınırlı hassasiyete sahiptir (yaklaşık %60–70)4,9 ve bazı RA hastaları seronegatif kalmaya devam eder10. Bu nedenle, RA'nın erken teşhisi, hastalık izlemi ve prognoz değerlendirmesi için daha hassas ve spesifik biyobelirteçler bulmak önemlidir11.
MikroRNA'lar (miRNA'lar), yaklaşık 22–25 baz uzunluğunda olan bir grup endojen kodlamayan düzenleyici RNA molekülleridir12,13. miRNA'ların çeşitli hastalıkların gelişiminde kilit düzenleyiciler olarak görev yaptığı ve anormal ekspresyonlarının hastalık patogenezi ile yakından ilişkili olduğu saptanmıştır13,14,15; bu durum miRNA'ları hastalık teşhisi ve terapötik izleme için gelecek vaat eden biyobelirteçler haline getirmektedir. Son birkaç yılda, miRNA'ların RA'daki rolü giderek daha fazla dikkat çekmiştir16. Çalışmalar, RA hastalarının serumunda, sinovyal dokularında ve periferik kan mononükleer hücrelerinde (PBMC'ler) birden fazla miRNA'nın (örneğin, miR-146a, miR-155 vb.) disregüle ekspresyon ile ilişkili olduğunu göstermiştir17,18,19. Bu miRNA'lar; inflamatuar sitokin üretimini düzenleyerek, sinovyal hücre proliferasyonunu ve invazyonunu teşvik ederek ve osteoklast diferansiyasyonunu etkileyerek RA patogenezine katkıda bulunurlar20. Bunlar arasında miR-488, insan kromozom 1q25.2 bölgesine eşlenmiştir21 ve önceki çalışmalar nöroprotektif etkilerini doğrulamıştır: gliomların22 ve nöroblastomların23 ilerlemesinde düzenleyici bir rol oynar ve özellikle miR-488-3p, osteoartrit (OA) durumunda osteoartritik kondrositlerin apoptozunu teşvik eder24. OA ve RA farklı eklem hastalıkları olsa da, sinovyal inflamasyon ve kıkırdak yıkımının patolojik süreçlerinde ortak mekanizmaları paylaşırlar25. miR-488-3p'nin benzer hedef yolları düzenleyerek RA'da rol oynayabileceğini hipotez ettik. Ancak, miR-488-3p'nin RA'daki spesifik rolü ve potansiyel mekanizmaları henüz aydınlatılmamıştır.
Çalışma, RA hastalarında serum miR-488-3p ekspresyon seviyelerindeki değişimleri ve bunun hastalık aktivitesi ile klinik göstergelerle olan ilişkisini inceleyerek, RA için non-invaziv bir tanısal belirteç olarak potansiyel değerini değerlendirmeyi amaçlamıştır. Bu çalışma, RA'da erken tarama ve hastalık progresyonunun öngörülmesine dair yeni bir bakış açısı sunarak RA'lı hastaların prognozunun iyileştirilmesine katkıda bulunmaktadır.
Protokol
Çalışma, Hefei BOE Hastanesi Etik Kurulu tarafından onaylanmış (Onay no. 2021–1) ve tüm katılımcılardan kayıt öncesinde yazılı bilgilendirilmiş onam alınmıştır.
Hastalar ve numuneler
Bu çalışmaya, Hefei BOE Hastanesi Romatoloji ve İmmünoloji Bölümü'nden (2010 ACR/EULAR sınıflandırma kriterlerine göre tanı almış) 135 RA hastası, Ortopedi Bölümü'nden (2018 Çin Tabipleri Birliği OA tanı kriterlerine göre tanı almış) 130 OA hastası ve aynı hastanenin sağlık tarama merkezinden yaş ve cinsiyet açısından eşleştirilmiş 125 sağlıklı kontrol dahil edilmiştir. Katılımcılar 30–80 yaş arasındaydı. Sağlıklı kontrollerin otoimmün hastalıklar, eklem bozuklukları ve akut enfeksiyonlar taşımadığı; kapsamlı öykü incelemesi, fizik muayene ve laboratuvar testleri ile doğrulanmıştır. Eşlik eden otoimmün hastalıkları olan, son 3 ay içinde enfeksiyon veya travma öyküsü bulunan, malignitesi olan veya hamile ya da emziren katılımcılar çalışma dışı bırakılmıştır.
Örnekleme ve hazırlama
Tüm çalışma deneklerinden aç karnına venöz kan toplandı. Oda sıcaklığında 30 dk pıhtılaşmanın ardından, 1500 × g hızda 15 dk santrifüjle serum örnekleri izole edildi. Serum, ileri analizlere kadar -80°C'de saklandı.
Klinik ve serolojik belirteçlerin saptanması
Hastalık durumunu ve inflamatuar aktiviteyi kapsamlı bir şekilde değerlendirmek amacıyla, standart klinik laboratuvar yöntemleri kullanılarak klinik ve serolojik biyobelirteçler ölçülmüştür. Spesifik olmayan sistemik inflamasyonu değerlendirmek için ESR, Westergren yöntemi ile ölçülmüştür. Akut faz inflamatuar yanıtını değerlendirmek için CRP, bir immünotürbidimetrik assay (normal referans değeri: <10 mg/L) kullanılarak kantifiye edilmiştir. RF, normal referans değeri ≤20 IU/mL olan bir enzim bağlantılı immünosorbent assay (ELISA) ile ölçülmüştür. RA tanısı için serolojik kanıt sağlamak amacıyla Anti-CCP antikorları, ikinci nesil bir ELISA kullanılarak ölçülmüştür.
Hücre hatları ve kültürü
RA'dan etkilenmiş insan fibroblast benzeri sinovyosit (HFLS-RA) hücreleri, %10 fetal sığır serumu (FBS) ve %1 penisilin-streptomisin ile takviye edilmiş Dulbecco's Modified Medium (DMEM) içerisinde büyütüldü. Hücreler, 37 °C sıcaklıkta ve %5 CO₂ içeren bir inkübatörde muhafaza edildi ve tüm deneyler için üçüncü ile altıncı pasajlar arasındaki hücreler kullanıldı.
RNA ekstraksiyonu ve kantitatif gerçek zamanlı RT-PCR
Toplam RNA, bir RNA ekstraksiyon reaktifi kullanılarak serum örneklerinden ekstrakte edildi. Ters transkripsiyon, üretici talimatlarına uygun olarak miRNA'lar için bir miRNA birinci zincir sentez kiti ve haberci RNA (mRNA) hedef genleri için bir ters transkripsiyon kiti kullanılarak gerçekleştirildi. Kantitatif gerçek zamanlı polimeraz zincir reaksiyonu (RT-qPCR), SYBR Green tabanlı bir PCR master mix ile gerçek zamanlı PCR sistemi kullanılarak yapıldı. Termodöngü programı 95 °C'de 30 s ön-denatürasyon; ardından 40 amplifikasyon döngüsü (95 °C'de 5 s denatürasyon ve 60 °C'de 30 s tavlama/uzama) şeklinde ayarlandı. Her örnek üç tekrarlı olarak analiz edildi. U6 küçük nükleer RNA (U6 snRNA) ve gliseraldehit-3-fosfat dehidrogenaz (GAPDH), sırasıyla miRNA ve mRNA normalizasyonu için endojen referans genler olarak kullanıldı. Primer dizileri Ek Tablo 1'de özetlenmiştir. miR-488-3p ve hedef genlerinin bağıl ekspresyon seviyeleri 2−ΔΔCt yöntemi kullanılarak hesaplandı. Düzenleyici ilişkilerini doğrulamak için miR-488-3p'nin aşırı ekspresyonu veya inhibisyonu sonrası hedef genlerin mRNA seviyelerindeki değişimler de analiz edildi.
Hücre transfeksiyonu
HFLS-RA hücreleri, kuyuk başına 5 × 10⁵ hücre yoğunluğunda 6 kuyucuklu plakalara ekildi. Hücreler, üretici talimatları izlenerek lipozom tabanlı bir transfeksiyon reaktifi kullanılarak transfekte edildi. Transfeksiyon grupları, tekli transfeksiyon ve ko-transfeksiyon gruplarını içeriyordu. Tekli transfeksiyon grupları şunlardı: 1) kontrol—transfekte edilmemiş hücreler; 2) mimic negatif kontrol (NC)—miR-488-3p mimic negatif kontrolü ile transfekte edilen hücreler; 3) miR-488-3p mimic—miR-488-3p mimic ile transfekte edilen hücreler; 4) inhibitör NC—miR-488-3p inhibitör negatif kontrolü ile transfekte edilen hücreler; 5) miR-488-3p inhibitör—miR-488-3p inhibitör ile transfekte edilen hücreler. Ko-transfeksiyon grupları şunlardı: 1) miR-488-3p mimic + overekspresyon-NC (oe-NC)—miR-488-3p mimic ve ROCK1 overekspresyon vektörlerinin negatif kontrolü ile ko-transfekte edilen hücreler; 2) miR-488-3p mimic + oe-ROCK1—miR-488-3p mimic ve ROCK1 overekspresyon vektörleri ile ko-transfekte edilen hücreler. Tüm transfeksiyon dizileri Ek Tablo 1'de özetlenmiştir. ROCK1'in overekspresyon vektörü, kodlayan dizi (CDS) bölgesinin pcDNA 3.1 plazmidine klonlanmasıyla oluşturuldu. Transfekte edilen hücreler, hücre transfeksiyonundan 48 s sonrası takip eden deneyler için hazır hale getirildi.
Hücre fonksiyon testi
Hücre proliferasyon analizi (Hücre Sayım Kiti-8 [CCK-8]): Transfekte edilmiş HFLS-RA hücreleri, grup başına üç replika kuyucuk olacak şekilde 96 kuyucuklu plakalara 5 × 10³ hücre/kuyucuk yoğunluğunda ekildi. Transfeksiyondan 0, 24, 48 ve 72 saat sonra, her kuyucuğa 10 µL CCK-8 çözeltisi eklendi ve ardından 37 °C'de 2 saat inkübasyon yapıldı. Absorbans, bir mikroplaka okuyucu kullanılarak 450 nm (algılama dalga boyu) ve 630 nm (referans dalga boyu) değerlerinde ölçüldü. Rölatif proliferasyon oranı, 0. saat baz alınarak hesaplandı.
Apoptoz tespiti (akış sitometrisi): Apoptoz, Annexin V-floresan izotiyosiyanat (FITC)/propidyum iyodür (PI) apoptoz analizi ile değerlendirildi. Hücreler uygun plazmidlerle transfekte edildi ve ardından tripsinizasyon sonrası toplandı. Apoptoz oranı akış sitometrisi ile belirlendi.
İnflamatuar faktör analizi (Enzyme-Linked Immunosorbent Assay [ELISA]): HFLS-RA hücreleri 24 kuyucuklu plaklara ekildi ve belirtilen miR-488-3p mimic, miR-488-3p inhibitörü veya bunlara karşılık gelen negatif kontrollerle 48 sa boyunca transfekte edildi. Hücre kültürü süpernatantlarındaki interleukin-6 (IL-6), tumor necrosis factor-α (TNF-α) ve interleukin-1β (IL-1β) konsantrasyonları ELISA kitleri kullanılarak kantifiye edildi.
Hedef doğrulaması
Hedef tahmini: TargetScan veri tabanı26 kullanılarak ROCK1'in miR-488-3p'nin bir alt hedefi olduğu tahmin edilmiştir. miR-488-3p ile ROCK1 3′-çevrilmeyen bölgesi (3′UTR) arasındaki öngörülen bağlanma bölgeleri de belirlenmiştir.
Dual-Luciferase Reporter Gen Analizi: ROCK1'in vahşi tip veya mutant 3′UTR bölgesi pGL3 plazmidine klonlanmıştır. Öngörülen bağlanma ve mutant bölgeler Şekil 4'te gösterilmiştir. HEK-293T hücreleri, oluşturulan vektörlerle birlikte miR-488-3p mimetiği veya inhibitörü ile ko-transfekte edilmiştir27. Lüsiferaz aktivitesi, miR-488-3p mimetiği veya inhibitörü ile transfeksiyondan 48 saat sonra ölçülmüştür.
RNA İmmünopresipitasyonu (RIP): HFLS-RA hücreleri, bir anti-Argonaute 2 (Ago2) antikoru (RRID: AB_2882071, 1:200 dilüsyon) veya bir immünoglobulin G (IgG) kontrol antikoru (RRID: AB_2819160, 1:5000 dilüsyon) ile inkübe edilmiş, ardından yukarıda açıklandığı şekilde RNA ekstraksiyonu ve ROCK1 mRNA zenginleştirmesi için kantitatif PCR (qPCR) uygulanmıştır.
İstatistiksel analiz
Çalışma, SPSS 23.0 (RRID: SCR_002865) ve GraphPad Prism 9.0 (RRID: SCR_002798) kullanılarak istatistiksel olarak analiz edilmiştir. Ölçüm verileri ortalama ± standart sapma (SD) olarak ifade edilmiştir. Tüm deneyler üç biyolojik tekerrür ile gerçekleştirilmiş ve her biyolojik tekerrür üç kez analiz edilmiştir. Ham veriler ek materyale eklenmiştir. Parametrik istatistiksel testlerden önce veriler normal olasılık (P-P) grafiği kullanılarak değerlendirilmiştir. Sürekli bazal değişkenleri (örneğin yaş, vücut kitle indeksi [BMI] vb.) karşılaştırmak için bağımsız örneklemler t-testi, kategorik değişkenler (örneğin cinsiyet vb.) için ise ki-kare testi kullanılmıştır. Gen ekspresyon seviyeleri bağımsız örneklemler t-testi kullanılarak karşılaştırılmıştır. Farklı zaman noktalarındaki hücre proliferasyonundaki değişiklikler tekrarlı ölçümler varyans analizi (ANOVA) ile analiz edilirken, akış sitometrisi ile belirlenen apoptoz oranlarını karşılaştırmak için tek yönlü ANOVA kullanılmıştır. Korelasyon analizi, Spearman (normal dağılıma uymayan değişkenler için) ve Pearson (normal dağılıma uyan değişkenler için) yöntemleri kullanılarak gerçekleştirilmiştir. Tanısal performans, alıcı işletim karakteristiği (ROC) eğrisi analizi kullanılarak değerlendirilmiştir. Optimal kesme değeri, duyarlılık ve özgüllük, maksimum Youden indeksi kullanılarak belirlenmiştir. Tüm istatistiksel testler çift yönlüydü ve p < 0.05 değeri istatistiksel olarak anlamlı kabul edildi.
Sonuçlar
Çalışma katılımcılarının temel özellikleri
Bu çalışma, sistematik analiz için 125 sağlıklı kontrol, 130 OA hastası ve 135 RA hastasını içermiştir (Tablo 1). Üç grubun başlangıç özelliklerinde yaş (p = 0,191), cinsiyet oranı (p = 0,203) ve BMI (p = 0,562) açısından anlamlı bir fark görülmemiş olup, bu durum çalışma popülasyonunun karşılaştırılabilirliğini sağlamıştır. Hastalık özellikleri açısından, RA grubundaki ESR (82,63 ± 40,32'ye karşı 18,39 ± 6,38 mm/h, p < 0,01) ve CRP seviyeleri (56,3 ± 38,07'ye karşı 10,54 ± 4,98 mg/L, p < 0,01), sistemik inflamasyon seviyesini yansıtacak şekilde OA grubundakilerden anlamlı derecede yüksek bulunmuştur. Bu sırada, RA ile ilişkili bir serolojik marker olan RF, %70,37'de (95/135) pozitif çıkmış ve anlamlı derecede daha yüksek bir serum konsantrasyonu (14,13 ± 81,05'e karşı 5,10 ± 1,37 IU/mL, p < 0,01) göstermiştir; RA hastalarındaki anti-CCP pozitiflik oranı %56,30 (76/135) olup DAS28 skoru 4,12 ± 1,36 olarak belirlenmiştir.
RA hastalarında miR-48-3p'nin ekspresyon özellikleri vele tanısal değeri
Serum miR-48-3p ekspresyon seviyeleri, OA hastaları ve sağlıklı kontrollerle karşılaştırıldığında RA hastalarında anlamlı düzeyde düşük bulunmuştur (p < 0.01, Şekil 1A). ROC eğrisi analizi, miR-48-3p'nin RA'yı OA ve sağlıklı kontrollerden ayırmada yüksek tanısal doğruluğa sahip olduğunu göstermiştir: RA'nın sağlıklı kontrollerden ayırt edilmesinde AUC değeri 0,931 (%95 CI: 0,896–0,967), duyarlılık %96,15 (%95 CI: %91,31–%98,35) ve özgüllük %80,95'tir (%95 CI: %73,2–%86,85, p < 0,01, Şekil 1B); RA'nın OA hastalarından ayırt edilmesinde ise AUC değeri 0,800 (%95 CI: 0,747–0,854), duyarlılık %85,93 (%95 CI: %79,06–%90,80) ve özgüllük %66,15'tir (%95 CI: %57,66–%73,72, p < 0,01, Şekil 1C). Çok değişkenli lojistik regresyon analizi, miR-488-3p'yi RA riski ile ilişkili bağımsız bir faktör olarak tanımlamıştır (OR = 0,166, %95 CI: 0,097–0,284; Tablo 2).
miR-48-3p'nin RA klinik göstergeleri ile korelasyon analizi
Serum miR-48-3p ekspresyon seviyeleri; ESR, CRP, RF ve DAS28 dahil olmak üzere RA'nın temel klinik göstergeleri ile anlamlı düzeyde negatif korelasyon göstermiştir (tüm p < 0.01; Tablo 3). Spesifik olarak, miR-48-3p; ESR (r = −0.718), CRP (r = −0.726), RF (r = −0.805) ve DAS28 skoru (r = −0.836) ile negatif korelasyon göstermiştir (Tablo 3).
miR-48-3p'nin aşırı ekspresyonu, HFLS-RA hücrelerinde hücre proliferasyonunu ve inflamatuar yanıtları inhibe eder ve apoptozu indükler
miR-48-3p'nin HFLS-RA fonksiyonu üzerindeki etkisini araştırmak için, mimikler ve inhibitörler ile transfeksiyon yaparak ifadesini modüle ettik. RT-qPCR analizi, miR-48-3p ifadesi düzeyinin miR-488-3p mimik grubunda kontrol grubuna kıyasla anlamlı derecede daha yüksek olduğunu (p = 0.001), miR-488-3p inhibitör grubunun ifadesi düzeyinin ise anlamlı derecede daha düşük olduğunu (p = 0.03, Şekil 2A) doğrulamıştır. CCK-8 analizi, miR-48-3p'nin aşırı ifadesinin hücre proliferasyonunu inhibe ettiğini ve bunun 24 h, 48 h ve 72 h sürelerinde kontrol grubundan anlamlı derecede daha düşük olduğunu (p = 0.0208, p < 0.01, p = 0.036) göstermiş; miR-48-3p ifadesinin inhibisyonu ise hücre proliferasyonunu anlamlı derecede artırmıştır (Şekil 2B). Akış sitometrisi, miR-48-3p'nin aşırı ifadesinin apoptozu anlamlı derecede teşvik ettiğini göstermiştir (p = 0.03, Şekil 2C).
Ardından, miR-48-3p ekspresyon artışının inflamatuar sitokin seviyeleri üzerindeki etkisini incelemek için bir ELISA gerçekleştirdik. Sonuçlar, miR-48-3p aşırı eksprese edildiğinde, inflamatuar sitokinlerin (IL-6, TNF-α ve IL-1β) seviyelerinin anlamlı derecede azaldığını (p < 0.01, Şekil 3A-C), miR-488-3p ekspresyonunun inhibisyonunun ise ters etki yarattığını göstermiştir. Bu anlamlı düzenleyici etkiler, üç bağımsız biyolojik tekrarlı deneyin tamamında doğrulanmış ve negatif kontrollerde anlamlı bir değişiklik görülmemiştir (p > 0.05).
MiR-488-3p, ROCK1 moleküllerinin ROCK1 ekspresyonunu regüle eder
RA hastalık progresyonundaki miR-48-3p rolünün altında yatan moleküler mekanizmaları aydınlatmak için, miR-48-3p'nin aşağı akış hedeflerini inceledik. Biyoinformatik analizler, miR-48-3p'nin ROCK1'in 3'UTR bölgesine bağlanacağının öngörüldüğünü gösterdi (Şekil 4A). Çift lüsiferaz raporlayıcı deneyi, yabani tip ROCK1 3'UTR'nin miR-48-3p taklitleri ile birlikte transfekte edildiğinde lüsiferaz aktivitesinin anlamlı düzeyde azaldığını (p < 0.01) ve miR-48-3p ekspresyonu inhibe edildiğinde lüsiferaz aktivitesinin anlamlı düzeyde arttığını (p < 0.01) doğruladı; buna karşın, bağlanma bölgesinin mutasyona uğratılmasından sonra bu düzenleyici etkide anlamlı bir değişiklik gözlenmedi (Şekil 4B). RIP deneyleri, ROCK1 mRNA ekspresyon seviyesinin IgG kontrollerine kıyasla Ago2 antikorla zenginleştirilmiş komplekslerde anlamlı düzeyde yükseldiğini göstererek bu düzenleyici ilişkiyi daha da doğruladı (p < 0.01, Şekil 4C).
Ek olarak, klinik örneklerde ROCK1, miR-48-3p'ninle ters bir ekspresyon paterni göstermiş olup, hem OA hastalarına hem de sağlıklı kontrollere kıyasla ROCK1'in anlamlı düzeyde yukarı regülasyonu gözlemlenmiştir (Şekil 4D). HFLS-RA hücrelerinde, RT-qPCR ile miR-48-3p'nin aşırı ekspresyonunun ROCK1 ekspresyonunda anlamlı bir azalmaya yol açtığı (p = 0,0093), miR-488-3p'nin inhibisyonunun ise ROCK1 ekspresyonunu anlamlı şekilde artırdığı belirlenmiştir (p = 0,003, Şekil 4E).
ROCK1, miR-48-3p'nin HFLS-RA hücreleri üzerindeki düzenleyici etkilerine aracılık eder
HFLS-RA hücrelerinde, miR-48-3p aşırı ifadesinin ROCK1 ekspresyonu üzerindeki baskılayıcı etkisi, ROCK1 aşırı ifade vektörlerinin transfeksiyonu ile geri çevrilmiştir (Şekil 5A). Benzer şekilde, miR-488-3p aşırı ifadesinin hücre proliferasyonu üzerindeki inhibitör etkisi, ROCK1 aşırı ifadesi ile azaltılmıştır (Şekil 5B). Ayrıca, ROCK1 aşırı ifadesi, miR-48-3p tarafından indüklenen artmış apoptozu da geri çevirmiş (Şekil 5C) ve miR-48-3p aşırı ifadesi ile baskılanmış olan inflamatuar sitokin seviyelerini geri kazandırmıştır (Şekil 5D).
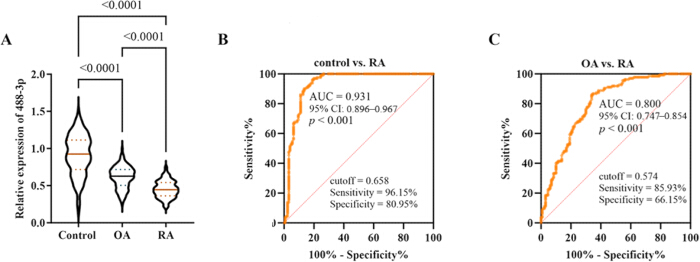
Şekil 1. Romatoid artrit (RA), osteoartrit (OA) hastaları ve sağlıklı kontrollerde miR-48-3p ekspresyon seviyeleri ve tanısal performansı. (A) RA hastalarında, OA hastalarında ve sağlıklı kontrollerde miR-48-3p'nin göreceli ekspresyon seviyelerinin karşılaştırılması. (B) RA'yı sağlıklı kontrollerden ayırt etmede miR-48-3p'nin alıcı işletim karakteristiği (ROC) eğrisi analizi. (C) RA ve OA hastalarını birbirinden ayırt etmek için miR-48-3p'nin ROC eğrisi analizi. AUC, eğri altındaki alan; CI, güven aralığı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
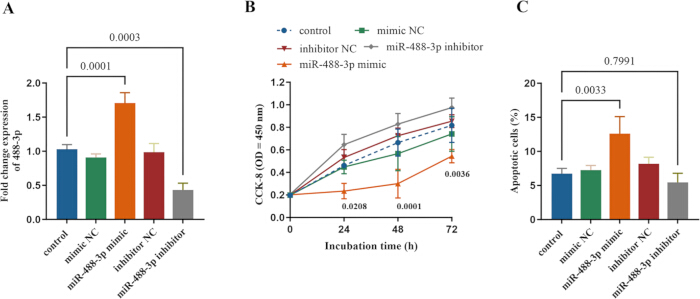
Şekil 2. miR-48-3p'nin HFLS-RA hücrelerindeki fonksiyonel etkileri. (A) Transfekte edilmiş HFLS-RA hücrelerinde miR-488-3p'nin göreceli ekspresyonu, kantitatif ters transkripsiyon polimeraz zincir reaksiyonu (RT-qPCR) ile belirlenmiştir. (B) miR-48-3p aşırı ekspresyonunun ve inhibisyonunun hücre proliferasyonu üzerindeki etkileri. (C) miR-48-3p aşırı ekspresyonunun ve inhibisyonunun apoptoz üzerindeki etkileri. Veriler ortalama ± SD olarak sunulmuştur. Tüm ölçümler, her biri üç teknik tekrardan oluşan üç biyolojik tekrarlı olarak gerçekleştirilmiştir. p < 0,05, belirtilen gruplar arasında istatistiksel olarak anlamlı bir fark olduğunu gösterir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
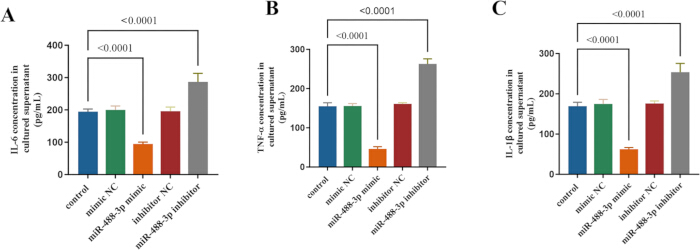
Şekil 3. miR-488-3p'nin enflamatuar sitokin salınımı üzerindeki etkisi. (A) Interlökin-6 (IL-6). (B) Tümör nekroz faktörü-α (TNF-α). (C) İnterlökin-1β (IL-1β). Sitokin konsantrasyonları, enzimle bağlantılı immunosorbent assay (ELISA) ile ölçülmüştür. Veriler ortalama ± SD olarak sunulmuştur. Tüm ölçümler, her biri üç teknik replika içeren üç biyolojik replika kullanılarak gerçekleştirilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
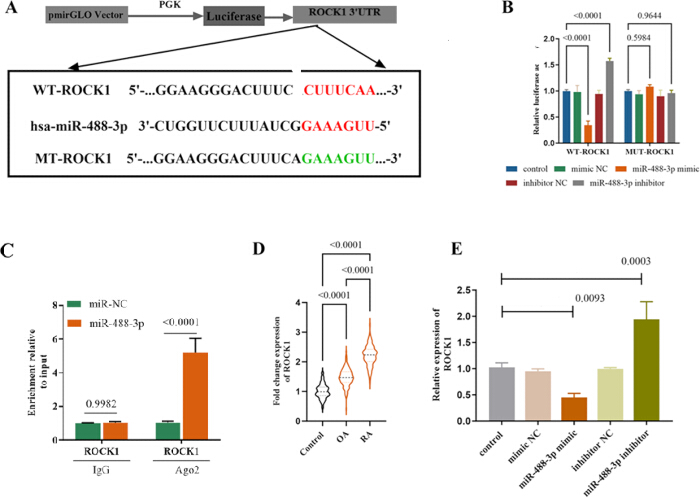
Şekil 4miR-488-3p'nin ROCK1 üzerindeki hedeflemiş düzenlemesinin altında yatan moleküler mekanizmanın doğrulanması. (A) ROCK1'in 3′-transleyemeyen bölgesindeki (3′UTR) miR-48-3p'nin öngörülen bağlanma bölgesi. (B) miR-48-3p ile vahşi tip veya mutant ROCK1 3′UTR arasındaki etkileşimi gösteren çift lüsiferaz raporlayıcı testi. (C) Argonaute 2 (Ago2) antikorla zenginleştirilmiş komplekslerde ROCK1 haberci RNA (mRNA) zenginleşmesini gösteren RNA immünopresipitasyon (RIP) analizi. (D) RA'lı hastalarda, OA'lı hastalarda ve sağlıklı kontrollerde bağıl ROCK1 ekspresyon seviyeleri. (E) Kantitatif ters transkripsiyon polimeraz zincir reaksiyonu (RT-qPCR) ile belirlenen, transfekte edilmiş HFLS-RA hücrelerindeki bağıl ROCK1 ekspresyonu. Veriler ortalama ± SD olarak sunulmuştur. Tüm ölçümler, her biri üç teknik tekrar içeren üç biyolojik replika kullanılarak gerçekleştirilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
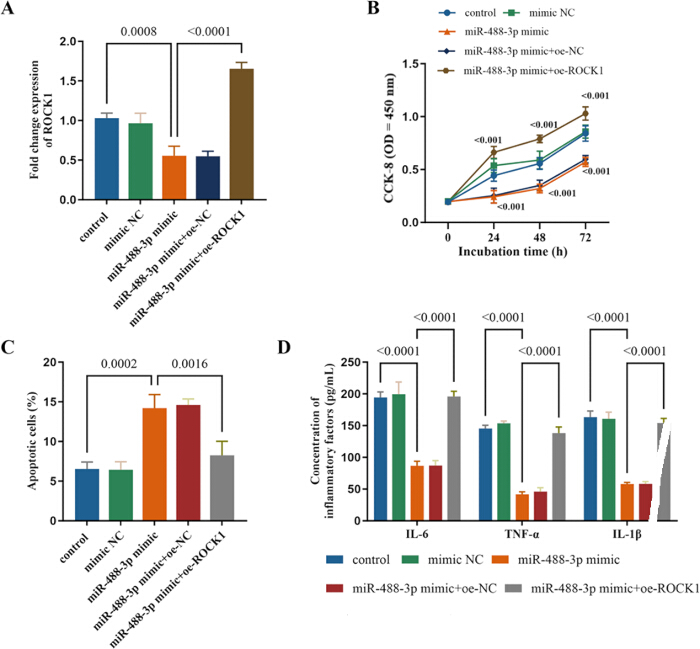
Şekil 5miR-48-3p tarafından HFLS-RA hücrelerinin düzenlenmesinde ROCK1'in rolü. (A) Hücre transfeksiyonunu takiben HFLS-RA hücrelerinde ROCK1 ekspresyonunun regülasyonu. (B) miR-48-3p aşırı ifadesi altında, ROCK1 aşırı ifadesinin hücre proliferasyonu üzerindeki etkileri. (C) miR-48-3p aşırı ekspresyonu altında ROCK1 aşırı ekspresyonunun apoptoz üzerindeki etkileri. (D) miR-48-3p aşırı ekspresyonu altında, ROCK1 aşırı ekspresyonunun inflamatuar sitokin üretimi üzerindeki etkileri. Veriler ortalama ± SD olarak sunulmuştur. Tüm ölçümler, her biri üç teknik tekrardan oluşan üç biyolojik tekrarla gerçekleştirilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Değişken | Kontrol (n = 125) | OA (n = 130) | RA (n = 135) | p-değeri |
| Yaş (yıl) | 5.10 ± 9.30 | 57.21 ± 10.27 | 5.22 ± 1.61 | 0.191 |
| Cinsiyet (erkek/kadın) | 74/51 | 63/67 | 69/66 | 0.203 |
| VKİ (kg/m2) | 2.79 ± 1.73 | 2.98 ± 1.98 | 23.04 ± 2.05 | 0.562 |
| Hastalık süresi (yıl) | - | 7.96 ± 4.0 | 8.03 ± 3.83 | 0.82 |
| Anti-CCP pozitif (n/% comparative) | - | - | 76 (56.30) | - |
| ESR (mm/h) | 18.39 ± 6.38 | 82.63 ± 40.32 | <0.01 | |
| CRP (mg/L) | 10.54 ± 4.98 | 56.3 ± 38.07 | <0.01 | |
| RF pozitif | - | - | 95 (70.37) | |
| RF (IU/mL) | - | 5.10 ± 1.37 | 14.13 ± 81.05 | <0.01 |
| DAS28 | - | - | 4.12 ± 1.36 | - |
Tablo 1: Çalışma katılımcılarının temel özellikleri. Üç çalışma grubu demografik özellikler açısından benzerdi. RA hastaları yüksek enflamatuar markerlar ve RF seviyeleri sergiledi.
| Değişken | OR | 95%CI | p-değeri |
| Yaş (yıl) | 1.41 | 0.82–2.42 | 0.21 |
| Cinsiyet (erkek/kadın) | 1.209 | 0.707–2.067 | 0.489 |
| BMI (kg/m2) | 1.36 | 0.778–2.295 | 0.293 |
| Hastalık süresi (yıl) | 1.13 | 0.663–1.929 | 0.653 |
| MiR-483-3p | 0.16 | 0.097–0.284 | <0.01 |
Tablo 2: Osteoartritin romatoid artrite ilerlemesi ile ilişkili, çok değişkenli lojistik regresyondan türetilen bağımsız faktörler. MiR-48-3p'nin OA hastalarında RA gelişme riski ile ilişkili olduğu belirlenmiştir.
| Ögeler | MiR-48-3p (Romatoid artrit) | p-değeri |
| Korelasyon(r) | ||
| ESR (mm/h) | -0.718 | <0.01 |
| CRP (mg/L) | -0.726 | <0.001 |
| RF (IU/mL) | -0.805 | <0.01 |
| DAS28 | -0.836 | <0.01 |
Tablo 3: miR-488-3p ile RA hastalarının klinikopatolojik özellikleri arasındaki korelasyonlar. miR-48-3p, RA'lı hastalarda ESR, CRP, RF ve DAS28 skoru ile anlamlı düzeyde negatif korelasyon göstermiştir.
Ek Tablo 1. Hücre transfeksiyonu ve PCR analizi sekans bilgileri. Çalışmada kullanılan primer sekansları ve transfeksiyon reaktifleri özetlenmiştir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Smolen ve ark.1 tarafından RA tanısı ve tedavisine yönelik güncel kılavuzlarda vurgulandığı üzere, yeni biyobelirteçlerin geliştirilmesi önemli bir klinik değere sahiptir. Bu çalışmada, serum miR-488-3p'nin RA hastalarında anlamlı derecede azaldığını onayladık ve nispeten tatmin edici duyarlılık ve özgüllük ile gelecek vaat eden bir tanısal performans sergilediğini gösterdik. RA'nın erken tanısı her zaman klinik bir zorluk olmuştur ve mevcut biyobelirteçler RA tanısı için yeterince duyarlı değildir; miR-488-3p'nin anlamlı tanısal potansiyeli, özellikle seronegatif RA hastalarının belirlenmesi konusunda bu boşluğu doldurabilir. Sağlıklı bireylerle karşılaştırıldığında, RA hastaları daha belirgin sistemik inflamasyon sergilemiştir. OA hastalarında ağırlıklı olarak lokal dejeneratif eklem bozukluğu görülürken, düşük dereceli sistemik inflamasyon da sıklıkla gözlemlenir. Bu nedenle, miR-488-3p'nin ayırt etme etkinliği, sağlıklı bireylerle karşılaştırıldığında OA hastalarıyla karşılaştırıldığından çok daha yüksektir. miR-488-3p'nin tanısal performansı, yerleşik klinik biyobelirteçlerin performansı ile doğrudan karşılaştırılmamıştır. Bu çalışmaya dahil edilen hastalar, anti-CCP antikorları, RF, ESR ve CRP gibi yerleşik biyobelirteçleri içeren güncel klinik RA altın standardına göre tanı almışlardır. Bu belirteçlerde OA ve RA hastaları arasında anlamlı farklar gözlemlenmiştir (Tablo 1). Bu nedenle, bu kohort miR-488-3p'nin tanısal performansını bu yerleşik biyobelirteçlerle doğrudan karşılaştırmak için uygun değildi. Bu tür karşılaştırmalar bağımsız bir doğrulama kohortu gerektirmektedir.
Ek olarak, miR-488-3p ekspresyon seviyelerinin, sistemik inflamatuar belirteçler (ESR, CRP)28 ve otoantikorlar (RF)6 dahil olmak üzere RA'nın çeşitli klinik göstergeleri ile anlamlı düzeyde negatif korelasyon gösterdiği bulunmuştur. Klinik açıdan özellikle önemli olan miR-488-3p, Hastalık Aktivite Skoru (DAS28) ile güçlü bir negatif korelasyon göstermiştir. DAS28; eklem şişliği, hassasiyet, inflamasyon ve hastaların klinik durumuna dayalı olarak hastalık aktivitesini yansıtan kompozit bir indekstir. Bu nedenle, söz konusu bulgular miR-488-3p'nin RA'da hastalık aktivitesi için potansiyel bir biyobelirteç olarak hizmet edebileceğini düşündürmektedir. Bu durum ayrıca, miR-488-3p'nin RA patogenezindeki düzenleyici rolünü desteklemekte ve inflamatuar sinyal yolaklarını veya otoimmün yanıtları inhibe ederek hastalık progresyonunu etkileyebileceğini göstermektedir29.
Fonksiyonel deneylerde, miR-488-3p'nin RA hastalarından alınan HFLS-RA hücrelerinin proliferasyonunu baskıladığını ve apoptozunu teşvik ettiğini, ayrıca enflamatuar sitokinlerin (IL-6, TNF-α ve IL-1β) üretimini önemli ölçüde azalttığını bulduk. HFLS-RA hücreleri, RA'nın patolojik sürecinde kilit bir rol oynar30; bunların anormal proliferasyonu ve invaziv büyümesi sinovyal hiperplaziye ve eklem yıkımına yol açabilirken, enflamatuar faktörlerin aşırı üretimi lokal ve sistemik enflamatuar yanıtları daha da şiddetlendirir31. Bu nedenle, miR-488-3p tarafından HFLS-RA fonksiyonunun düzenlenmesi, RA'daki sinovyal invazyonu ve kemik erozyonunu doğrudan inhibe ederek yeni hedefli terapötik stratejilerin geliştirilmesi için teorik bir temel sağlayabilir. Önceki çalışmalar, miR-155 gibi diğer miRNA'ların sinoviyosit fonksiyonunu düzenleyerek RA progresyonunu etkileyebildiğini göstermiştir19, bu da bulgularımızı daha da desteklemektedir.
Mekanistik çalışmalar, miR-488-3p'nin doğrudan ROCK1'i hedefleyebildiğini ve 3'UTR bölgesine bağlanarak ekspresyonunu inhibe edebildiğini göstermiştir. ROCK1; hücre iskeleti reorganizasyonu, inflamatuar yanıt ve fibrozis süreçlerinde yer alan Rho/ROCK sinyal yolağının temel bir efektör molekülüdür32. Önceki çalışmalar, ROCK1'in RA sinoviyositlerinde yüksek düzeyde eksprese edildiğini ve bu hücrelerin migrasyonu ile invazyonunu teşvik ettiğini göstermiştir33. Beklendiği üzere, ROCK1'in aşırı ekspresyonu, miR-488-3p'nin HFLS-RA hücreleri üzerindeki etkilerini önemli ölçüde tersine çevirmiş ve bu durum, ROCK1'in RA progresyonundaki miR-488-3p düzenleyici rolündeki etkisine işaret etmiştir.
Buna rağmen, gelecekteki araştırmalarda yapılması gereken daha çok iş bulunmaktadır. Klinik örneklerde miR-488-3p ekspresyonu, iç referans olarak U6 kullanılarak RT-qPCR ile değerlendirilmiştir. Önceki çalışmalar, özellikle serum gibi dolaşım örneklerinde U6'nın stabilitesi konusunda çelişkili bulgular bildirmiştir. Bu çalışmada U6'nın stabilitesini sağlamak için ön deneyler yapılmış olsa da, U6'nın potansiyel değişkenliği hala bir sınırlamadır ve bu durum yanlış tanı riskini artırmaktadır. Daha stabil iç referans genler kullanılarak daha ileri doğrulamalar yapılması gereklidir. Öte yandan, miR-488-3p'nin klinik değerlendirmesi, dış doğrulama yapılmamış tek merkezli bir kohorta dayanmaktadır. Örneklem büyüklüğü nispeten küçüktür ve hastane ölçeğiyle sınırlıdır. Ayrıca, miR-488-3p'nin prognostik değerini değerlendiren boylamsal takipler eksiktir. Bu sınırlamalar gelecekteki çalışmalarda ele alınmalıdır. Dahası, bazı çalışmalar miRNA'ların in vivo iletiminin klinik translasyon için ana bir zorluk olmaya devam ettiğini göstermektedir34. Gelecekteki çalışmalar, koşullu nakavt fareler oluşturarak veya nanotaşıyıcılar gibi hedeflenmiş iletim sistemleri kullanarak miR-488-3p'nin terapötik potansiyelini in vivo olarak doğrulayabilir35.
Sonuç olarak, bu çalışma miR-488-3p'nin RA tanısında ve potansiyel terapötik hedeflemesindeki değerini ortaya koymuştur. MiR-488-3p, yüksek tanısal performans göstermiş ve apoptozu teşvik ederken HFLS-RA hücrelerinin proliferasyonunu ve enflamatuar yanıtlarını inhibe etmiştir. Bu durum, miR-488-3p'nin RA için yeni terapötik stratejilerin geliştirilmesinde gelecek vaat eden bir hedef olabileceğini göstermektedir. Gelecekteki araştırmalar şunlara odaklanmalıdır: 1) miR-488-3p'nin tanısal stabilitesinin geniş çok merkezli kohortlarda doğrulanması, 2) JAK inhibitörleri veya biyolojik ajanlar28 gibi mevcut terapötik ajanlarla olan sinerjik etkilerinin araştırılması ve 3) klinik translasyonel fizibilitelerini artırmak için miRNA iletim sistemlerinin optimize edilmesi36.
VERİLERİN ERİŞİLEBİLİRLİĞİ:
Bu çalışmanın bulgularını destekleyen ham veriler, bu makale ile birlikte sunulan ek materyallerde mevcuttur.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Annexin V-FITC Apoptosis Detection Kit | BD Bioscience | 556547 | hücre apoptozu |
| anti-Ago2 antikoru | Proteintech | 66720-1-Ig | RNA İmmünopresipitasyonu |
| CCK-8 solüsyonu | Dojindo | CK04 | hücre proliferasyonu |
| Dulbecco's Modified Eagle Medium (DMEM) | Thermo Fisher | 121000146 | hücre kültürü |
| Fetal sığır serumu | Thermo Fisher | 10437028 | hücre kültürü |
| Akım sitometresi | BD Bioscience | FACSCalibur | hücre apoptozu |
| Human anti-CCP antibody ELISA Kit | Cusabio | CSB-E09077h | anti-CCP tespiti |
| Human RF-IgA ELISA Kit | Feien Biotechnology | EH4270 | RF tespiti |
| Human rheumatoid arthritis fibroblast-like synoviocytes (HFLS-RA) | Cell Applications | HFLS-RA-200 | miR-488-3p fonksiyonunun in vitro doğrulaması |
| IgG kontrol antikoru | Abcam | ab205718 | RNA İmmünopresipitasyonu |
| Interleukin-1β (IL-1β) ELISA Kiti | R&D Systems | DY201-05 | hücresel IL-1β konsantrasyonu |
| Interleukin-6 (IL-6) ELISA Kiti | R&D Systems | D6050B | hücresel IL-6 konsantrasyonu |
| Liposome Transfection Reagent 3000 | Ingenuity Life Technologies | L3000015 | hücre transfeksiyonu |
| Mikroplaka okuyucu | BioTek | ELx808 | ELISA analizi |
| Mir-XTM miRNA First-Strand Synthesis Kit | Nihonbao Bioengineering Co., Ltd. | 638313 | ters transkripsiyon |
| Opti-MEM besiyeri | Ingenuity Life Technologies, Inc | 31985070 | hücre transfeksiyonu |
| pcDNA 3.1 | Invitrogen | V790-20 | ROCK1 overekspresyonu |
| Penisilin-streptomisin | Thermo Fisher | 15140122 | hücre kültürü |
| Phadia 250 Laboratuvar Sistemi | Thermo Fisher | Phadia 250 | kan analizi |
| PrimeScriptTM Reverse Transcription Kit | Nihonbao Bioengineering Co., Ltd. | RR037A | ters transkripsiyon |
| Propidyum iyodür (PI)/ ribonükleaz (RNase) | BD Bioscience | 550825 | hücre apoptozu |
| QuantStudio 5 sistemi | Applied Biosystems, Inc. | A28138 | PCR analizi |
| RNAiso Plus reaktifi | Nihonbao Bioengineering Co., Ltd. | 9108 | RNA izolasyonu |
| SYBR Green Premix Ex Taq | Nippon Poh Bio-Engineering Co., Ltd. | RR420A | PCR amplifikasyonu |
| TargetScan veri tabanı | TargetScan | N/A | bağlanma bölgeleri tahmini, (https://www.targetscan.org/) |
| Tina-quant C-Reactive Protein IV | Roche Diagnostics | 7876033190 | CRP tespiti |
| Tumor necrosis factor-α (TNF-α) ELISA Kiti | R&D Systems | DY210-05 | hücresel TNF-α konsantrasyonu |
Kaynaklar
- Smolen JS, et al. Rheumatoid arthritis. Nat Rev Dis Primers. 2018;4:18001.
- Kook HY, et al. Serum miR-214 as a novel biomarker for ankylosing spondylitis. Int J Rheum Dis. 2019;22(7):1196-201.
- Alamanos Y, Voulgari PV, Drosos AA. Incidence and prevalence of rheumatoid arthritis, based on the 1987 American College of Rheumatology criteria: a systematic review. Semin Arthritis Rheum. 2006;36(3):182-8.
- van der Linden MPM, et al. Long-term impact of delay in assessment of patients with early arthritis. Arthritis Rheum. 2010;62(12):3537-46.
- Anderson J, et al. Rheumatoid arthritis disease activity measures: American College of Rheumatology recommendations for use in clinical practice. Arthritis Care Res (Hoboken). 2012;64(5):640-7.
- Aletaha D, et al. 2010 rheumatoid arthritis classification criteria: an American College of Rheumatology/European League Against Rheumatism collaborative initiative. Arthritis Rheum. 2010;62(9):2569-81.
- Yang J, et al. MicroRNA-488: a miRNA with diverse roles and clinical applications in cancer and other human diseases. Biomed Pharmacother. 2023;165:115115.
- Molendijk M, Hazes JMW, Lubberts E. From patients with arthralgia, pre-RA and recently diagnosed RA: what is the current status of understanding RA pathogenesis? RMD Open. 2018;4(1):e000256.
- van Venrooij WJ, van Beers JJBC, Pruijn GJM. Anti-CCP antibodies: the past, the present and the future. Nat Rev Rheumatol. 2011;7(7):391-8.
- Szodoray P, et al. Anti-citrullinated protein/peptide autoantibodies in association with genetic and environmental factors as indicators of disease outcome in rheumatoid arthritis. Autoimmun Rev. 2010;9(3):140-3.
- Filer A, et al. Utility of ultrasound joint counts in the prediction of rheumatoid arthritis in patients with very early synovitis. Ann Rheum Dis. 2011;70(3):500-7.
- Zuo C, Fan P, Yang Y, Hu C. MiR-488-3p facilitates wound healing through CYP1B1-mediated Wnt/β-catenin signaling pathway by targeting MeCP2. J Diabetes Investig. 2024;15(2):145-58.
- Mendell JT, Olson EN. MicroRNAs in stress signaling and human disease. Cell. 2012;148(6):1172-87.
- Cai Z, Poulos RC, Liu J, Zhong Q. Machine learning for multi-omics data integration in cancer. iScience. 2022;25(2):103798.
- Fabian MR, Sonenberg N. The mechanics of miRNA-mediated gene silencing: a look under the hood of miRISC. Nat Struct Mol Biol. 2012;19(6):586-93.
- Duroux-Richard I, et al. Circulating miRNA-125b is a potential biomarker predicting response to rituximab in rheumatoid arthritis. Mediators Inflamm. 2014;2014:342524.
- Zakeri Z, et al. MicroRNA and exosome: key players in rheumatoid arthritis. J Cell Biochem. 2019;120(7):10930-44.
- Pauley KM, et al. Upregulated miR-146a expression in peripheral blood mononuclear cells from rheumatoid arthritis patients. Arthritis Res Ther. 2008;10(4):R101.
- Kurowska-Stolarska M, et al. MicroRNA-155 as a proinflammatory regulator in clinical and experimental arthritis. Proc Natl Acad Sci U S A. 2011;108(27):11193-8.
- Pers YM, et al. miR-155 contributes to the immunoregulatory function of human mesenchymal stem cells. Front Immunol. 2021;12:624024.
- Fu Q, et al. miR-488-3p alleviates neuropathic pain by regulating target gene ROCK1. Acta Neurobiol Exp (Wars). 2023;83(3):271-9.
- Xue W, et al. PVT1 regulates the malignant behaviors of human glioma cells by targeting miR-190a-5p and miR-488-3p. Biochim Biophys Acta Mol Basis Dis. 2018;1864(5 Pt A):1783-94.
- Muiños-Gimeno M, et al. Human microRNAs miR-22, miR-138-2, miR-148a, and miR-488 are associated with panic disorder and regulate several anxiety candidate genes and related pathways. Biol Psychiatry. 2011;69(6):526-33.
- Le TD, Zhang J, Liu L, Li J. Computational methods for identifying miRNA sponge interactions. Brief Bioinform. 2017;18(4):577-90.
- Scanzello CR, Goldring SR. The role of synovitis in osteoarthritis pathogenesis. Bone. 2012;51(2):249-57.
- McGeary SE, et al. The biochemical basis of microRNA targeting efficacy. Science. 2019;366(6472):eaav1741.
- Liu X, et al. Impaired AGO2/miR-185-3p/NRP1 axis promotes colorectal cancer metastasis. Cell Death Dis. 2021;12(4):390.
- Smolen JS, Aletaha D, McInnes IB. Rheumatoid arthritis. Lancet. 2016;388(10055):2023-38.
- O'Connell RM, Rao DS, Baltimore D. microRNA regulation of inflammatory responses. Annu Rev Immunol. 2012;30:295-312.
- Bottini N, Firestein GS. Duality of fibroblast-like synoviocytes in RA: passive responders and imprinted aggressors. Nat Rev Rheumatol. 2013;9(1):24-33.
- Firestein GS, McInnes IB. Immunopathogenesis of rheumatoid arthritis. Immunity. 2017;46(2):183-96.
- Amano M, Nakayama M, Kaibuchi K. Rho-kinase/ROCK: a key regulator of the cytoskeleton and cell polarity. Cytoskeleton (Hoboken). 2010;67(9):545-54.
- Peng H, et al. ROCK1 induces endothelial-to-mesenchymal transition in glomeruli to aggravate albuminuria in diabetic nephropathy. Sci Rep. 2016;6:20304.
- van der Meel R, et al. Smart cancer nanomedicine. Nat Nanotechnol. 2019;14(11):1007-17.
- Yin H, et al. Non-viral vectors for gene-based therapy. Nat Rev Genet. 2014;15(8):541-55.
- Setten RL, Rossi JJ, Han SP. The current state and future directions of RNAi-based therapeutics. Nat Rev Drug Discov. 2019;18(6):421-46.