Bu protokol; deneysel takip için sıralanmış, hipotez oluşturmaya yönelik aday metabolit ilişkili konak genlerin kısa bir listesini ve yapısal olarak önceliklendirilmiş protein-ligand komplekslerini üretmek amacıyla mikrobiyal metabolit hedef tahmini, rektal mukoza transkriptomiği, protein-protein etkileşimi ve yolca zenginleştirme, moleküler kenetleme, moleküler dinamik simülasyonu ve Moleküler mekanik/Poisson-Boltzmann yüzey alanı (MM-PBSA) bağlanma serbest enerjisi tahminini entegre etmektedir.
Yöntem makalesi
Konstipasyon Baskın İrritabl Bowel Sendromunda Mikrobiyal Metabolitlerle İlişkili Konak Genlerinin Önceliklendirilmesi İçin Hesaplamalı Bir İş Akışı
Bu makalede
Özet
Özet
Kamuya açık kimyasal, genomik ve yapısal veri tabanlarından, mikrobiyal metabolitlerle ilişkili konakçı genlerini ve protein-ligand komplekslerini sistematik olarak önceliklendirmek için standartlaştırılmış bir hesaplamalı işlem hattı bulunmamaktadır. Bu makale, kullanıcı tarafından tanımlanmış bir bağırsak mikrobiyotasından türetilmiş metabolit setini kabul eden ve deneysel takip için aday metabolit ilişkili konakçı genlerinin sıralanmış bir kısa listesini, zenginleştirilmiş biyolojik yolakları ve yapısal olarak önceliklendirilmiş protein-ligand komplekslerini üreten sekiz aşamalı bir iş akışını açıklamaktadır. İşlem hattı şunları entegre eder: (i) kemoenformatik metabolit profilleme; (ii) protein-kimyasal etkileşim ve ligand tabanlı hedef tahmin aracı ile bir moleküler kenetlenme programı kullanılarak çoklu veri tabanı aday hedef tahmini; (iii) kamuya açık transkriptomik verilerin diferansiyel gen ekspresyon analizi; (iv) hedef-diferansiyel eksprese olmuş gen örtüşmesi; (v) protein-protein etkileşim ağı inşası ve yolak zenginleştirme; (vi) bir moleküler kenetlenme programı ile moleküler kenetlenme; (vii) moleküler dinamik simülasyonları için kullanılan bir protein kuvvet alanı ile bir moleküler dinamik motoru kullanılarak 200 ns moleküler dinamik simülasyonu ve (viii) MM-PBSA bağlanma serbest enerjisi tahmini. Uygulamalı bir örnek olarak, kısa zincirli yağ asitlerini, safra asitlerini, triptofan türevli metabolitleri ve urolithin A'yı temsil eden, bağırsak mikrobiyotasından türetilmiş veya mikrobiyota tarafından modifiye edilmiş dokuz metabolit, kamuya açık IBS-C rektal mukoza transkriptomik veri seti GSE36701 kullanılarak işlenmiştir. İş akışı, bu veri setinde diferansiyel olarak eksprese edilen 17 benzersiz tahmin edilen metabolit ilişkili geni sıralamıştır. Kenetlenme, moleküler dinamik simülasyonu ve MM-PBSA analizleri yapısal olarak beş metabolit-protein kompleksini önceliklendirmiştir: litokolik asit-VDR, litokolik asit-NR1H4/FXR, ursodeoksikolik asit-NR1H4/FXR, triptamin-HTR2A (açık bir 1-Palmitoyl-2-oleoyl-sn-glisero-3-fosfokolin (POPC) lipid çift katmanında simüle edilmiştir) ve urolithin A-CASP3. Protokol, diğer metabolit setlerine, hastalık transkriptomik veri setlerine ve hedef sınıflarına uyarlanabilir şekilde tasarlanmıştır; tüm çıktılar, nedensel veya terapötik sonuçlar çıkarılmadan önce bağımsız transkriptomik replikasyon, protein düzeyinde doğrulama ve fonksiyonel ligand-yanıt analizleri gerektiren, hipotez üreten hesaplamalı tahminlerdir.
Giriş
Konstipasyonla seyreden irritabl bağırsak sendromu (IBS-C), tekrarlayan abdominal ağrı, değişmiş bağırsak alışkanlıkları, şişkinlik ve konstipasyon ile karakterize, genel popülasyonun yaklaşık %10–15'ini etkilediği tahmin edilen yaygın bir fonksiyonel gastrointestinal bozukluktur1,2. Sekretagoglar, prokinetikler ve antispazmodikler dahil olmak üzere mevcut farmakolojik tedaviler, hastaların bir kısmında bireysel semptomları iyileştirebilir; ancak, hastalığın karmaşık ve multifaktöriyel patobiyolojisini yansıtır şekilde, tedavi yanıtı heterojen kalmakta ve kalıcı remisyon nadiren sağlanmaktadır1,3,4. Bu nedenle, yeni terapötik hedefler için test edilebilir hipotezler oluşturmak amacıyla, bağırsak mikrobiyal sinyallerinin mukozal düzeyde nasıl iletildiğine dair daha kapsamlı bir mekanistik anlayış gereklidir.
Bağırsak mikrobiyotası; kısa zincirli yağ asitleri (SCFA'lar), sekonder safra asitleri, triptofan türevli bileşikler ve urolithinler gibi polifenol türevli metabolitler dahil olmak üzere kimyasal olarak çeşitli metabolitlerin üretimi ve biyotransformasyonu aracılığıyla alt gastrointestinal homeostaza katkıda bulunur5,6,7,8. Bu moleküller, kanonik metabolit algılayan membran reseptörlerinin çok ötesine geçerek nükleer reseptörleri, sitozolik enzimleri, histon modifiye eden proteinleri, peptit hormon öncüllerini ve hücre içi sinyal proteinlerini kapsayan geniş ve tam olarak karakterize edilmemiş bir moleküler hedef repertuvarı aracılığıyla konak hücrelerle iletişim kurar9. İrritabl bağırsak sendromu (İBS) olan hastalarda değişmiş bağırsak mikrobiyal topluluk kompozisyonu ve metabolit profilleri belgelenmiştir; bu durum, mikrobiyal metabolit yanıtlılığı ile ilişkili konak genlerin İBS-C rektal mukozasında transkripsiyonel olarak bozulup bozulmadığının araştırılması için biyolojik bir gerekçe sağlamaktadır10.
Dokuz metabolitten oluşan panel; kompakt, kimyasal olarak çeşitli ve biyolojik olarak yorumlanabilir, gut mikrobiyotası türevli veya mikrobiyota tarafından modifiye edilmiş küçük moleküllerden oluşan bir set sağlamak amacıyla önceden tanımlanmıştır. Seçim beş kritere dayandırılmıştır: konak-mikrobiyota sinyalizasyonunda yer alan temel mikrobiyal metabolit sınıflarının temsiliyeti; bilinen veya olası distal intestinal mukoza maruziyeti; kesin PubChem tanımlayıcılarının ve kanonik yapıların mevcut olması; ligand tabanlı hedef tahmini ve docking için moleküler boyut ve yapısal takip edilebilirlik; ve IBS-C'de epitel, nöroimmün, enteroendokrin, nükleer reseptör veya motilite ile ilgili sinyalizasyon için önceden belirlenmiş plausibilite. Seçilen panel; SCFA'lar olarak bütirat ve propiyonatı; safra asitleri olarak kenodeoksikolik asit, litokolik asit ve ursodeoksikolik asidi; triptofan türevli metabolitler olarak triptamin, indol-3-propiyonik asit ve indol-3-laktik asidi; ve gut mikrobiyotası türevli bir polifenol metabolit olarak urolithin A'yı içermektedir5,6,7,8,9,10.
Önceki hesaplamalı ve deneysel araştırmaların çoğu, tekil metabolit-reseptör veya metabolit-enzim çiftlerini izole olarak incelemiştir; bu yaklaşım, mikrobiyal metabolit sinyalleşmesinin konakçı yolakları boyunca sergilediği dağıtılmış ve yakınsak doğayı kapsamamaktadır9,11. Birden fazla analitik aşamanın entegrasyonu, tek bir aşamanın bağımsız olarak sağlayamayacağı, birbirini destekleyen bir filtreleme gücü sunar. Küratörlü veri tabanlarına karşı yapılan hesaplamalı hedef tahmini, her metabolit için geniş bir aday konakçı protein seti üretir. Hastalıkla ilişkili transkriptomik verilerle yapılan kesişim, bu seti önemli ölçüde filtreleyerek yalnızca transkriptleri hastalık bağlamında değişmiş olan adayları tutar. Yolak zenginleştirme ve protein-protein etkileşim ağı analizleri, ardından azaltılmış aday listesini bilinen biyolojik modüllere eşler. Moleküler kenetleme, her bir aday kompleks için bağlanma cebi tamamlayıcılığının ilk hesaplamalı değerlendirmesini sağlar ve MM-PBSA bağlanma serbest enerjisi ayrıştırması ile birlikte yapılan ek 200 ns moleküler dinamik (MD) simülasyonu, yalnızca kenetleme skorlarından elde edilemeyen, yapısal önceliklendirmeye zaman çözünürlüklü ve termodinamik bir boyut kazandırır. Her adımın sistematik entegrasyon ve ardışık filtreleme olmaksızın bağımsız olarak gerçekleştirilmesi, deneysel olarak yönetilemeyecek kadar geniş aday listeleriyle sonuçlanacak ve yakınsak yolak mimarisinin tespit edilmesini engelleyecektir.
Bu protokolün genel çerçevesinde, “metabolite-associated gene” (MAG - metabolit ilişkili gen) terimi ile; protein ürünü, en az bir küratörlü hesaplamalı tahmin veri tabanı tarafından bir veya daha fazla bağırsak mikrobiyota türevli metabolitin muhtemel moleküler hedefi olarak belirlenmiş olan ve transkripti, iş akışını kanıtlamak için kullanılan hastalığa özgü transkriptomik veri setinde farklı şekilde eksprese edilen bir insan geni kastedilmektedir. Bu operasyonel tanım; membran reseptörlerini, nükleer reseptörleri, sitozolik enzimleri, sinyal proteinlerini, peptit hormon öncüllerini ve diğer hücre içi proteinleri kasıtlı olarak kapsamaktadır. MAG belirlemesi, bir metabolitin bağlandığına, bir protein-ligand kompleksi oluşturduğuna, bir reseptörü aktive ettiğine, protein bolluğunu değiştirdiğine veya hastalığa neden olduğuna dair deneysel bir kanıt değil; deneysel doğrulama gerektiren, hesaplamalı olarak türetilmiş, hipotez üretici bir aday gösterimidir.
Bu protokol, bağımsız tekrarlanabilirliği, diğer metabolit panellerine veya hastalık veri setlerine uyarlanabilirliği ve diğer konakçı-mikrobiyota etkileşim bağlamlarına genişletilebilirliği sağlayacak yeterli operasyonel ayrıntıyla birlikte, sekiz aşamalı tam hesaplamalı iş akışını (Şekil 1) tanımlamaktadır. İş akışı, münhasiran olarak halka açık omik ve yapısal kaynaklar üzerinde çalışan bir hipotez oluşturma ve yapısal önceliklendirme çerçevesi olarak açıkça kapsamlandırılmıştır; yalnızca hesaplamalı çıktılardan yola çıkarak değişmiş metabolit konsantrasyonlarını, reseptör aktivasyon durumlarını, protein ekspresyon değişikliklerini, aşağı akış sinyalizasyon aktivitelerini veya klinik anlamlılığı çıkarım yapmaz. Burada, MAG'ları belirlemek ve sonraki deneysel takipler için metabolit-protein komplekslerini önceliklendirmek amacıyla, dokuz gut mikrobiyota kaynaklı veya mikrobiyota tarafından modifiye edilmiş metabolit ve halka açık IBS-C rektal mukozal transkriptomik veri seti GSE36701 kullanılarak protokol, uygulanmış bir örnek olarak gösterilmektedir.
Protokol
Analizde yalnızca GSE36701'den alınan, halka açık ve kimlikten arındırılmış transkriptomik veriler ile halka açık kimyasal, protein ve yapısal veri tabanları kullanılmıştır. Veri tabanlarına Ocak ve Mayıs 2026 tarihleri arasında erişilmiştir. Daha sonraki erişim tarihleri ayrı Materyal Tablosunda belgelenmiştir.
1. Çalışma tasarımı, donanım ve yazılım gereksinimleri
- Analize başlamadan önce iş akışını tanımlayın. Sekiz aşama kullanın: metabolit seçimi, hedef tahmini, diferansiyel ekspresyon analizi, hedef ve diferansiyel eksprese olmuş gen (DEG) örtüşmesi, protein-protein etkileşimi (PPI)/yolak zenginleştirme, moleküler docking, MD simülasyonu ve MM-PBSA tahmini.
- Docking, MD ve MM-PBSA'nın yalnızca yapısal önceliklendirme araçları olduğunu kaydedin. Bu çıktıları bağlanmanın, reseptör aktivasyonunun, protein bolluğu değişiminin, terapötik etkinliğin veya hastalık nedenselliğinin deneysel kanıtları olarak yorumlamayın.
- MD simülasyonlarını çalıştırmadan önce hesaplama donanımını onaylayın. 64 bit bir Linux işletim sistemi, 6 çekirdekli bir CPU veya daha iyisi, ≥8 GB VRAM'e sahip bir GPU hızlandırma platformu veya en az 8 GB VRAM'e sahip eşdeğer bir GPU hızlandırma platformu, minimum 32 GB RAM ve MD sistemi başına en az 200 GB boş depolama alanı kullanın.
- Temel yazılımları kaydedin: bir moleküler dinamik motoru, metabolit ligandların hedef proteinlere moleküler docking yazılımı, kimyasal dosya formatı dönüştürücü12, üç boyutlu ligand oluşturucu, ligand hazırlama aracı, bir docking giriş hazırlama kiti, metabolit ligandların hedef proteinlere moleküler docking yazılımı, genel amaçlı bir programlama ortamı, biyoinformatik yazılım çerçevesine sahip bir istatistiksel hesaplama ortamı ve bir diferansiyel gen ekspresyon analizi paketi.
- Yapısal analiz araçlarını kaydedin: web tabanlı membran sistem inşa aracı, CHARMM uyumlu ligand parametreleştirme servisi, moleküler mekanik/sürekli çözücü bağlanma enerjisi hesaplama aracı, moleküler topoloji ve parametre dönüştürme kütüphanesi, üç boyutlu moleküler görselleştirme programı ile moleküler görselleştirme ve iki boyutlu etkileşim diyagramı aracı 2021 (indirme bağlantıları ve versiyon bilgileri için Materyal Tablosuna bakın).
- Moleküler dinamik simülasyonları için kullanılan kesin protein kuvvet alanını, CGenFF, CHARMM-GUI, R/biyoinformatik yazılım çerçevesini ve moleküler mekanik/sürekli çözücü bağlanma enerjisi hesaplama aracı sürüm tanımlayıcılarını Materyal Tablosuna/ortam dosyasına kaydedin. Eksik tanımlayıcıları "geri getirilemez" olarak işaretleyin; bunları tahmin etmeyin.
2. Metabolit seçimi ve kemoinformatik karakterizasyon
- Hedef tahmininden önce metabolit panelini tanımlayın. Bütirat (PubChem CID: 264), propionat (CID: 1032), kenodeoksikolik asit (CID: 10133), litokolik asit (CID: 9903), ursodeoksikolik asit (CID: 31401), triptamin (CID: 1150), indol-3-propionik asit (CID: 3744), indol-3-laktik asit (CID: 92904) ve urolitin A'yı (CID: 5488186) dahil edin.
- Her bir metabolit için kanonik Basitleştirilmiş Moleküler Giriş Satır Sistemi (SMILES) ve PubChem CID bilgilerini alın. Hedef tahmininden önce eş anlamlıları ve mükerrer yapıları doğrulayın. Nihai tanımlayıcıları metabolit ana sayfasına kaydedin.
- Kanonik SMILES dizilerini, fizikokimyasal özellik ve ADME tahmini web aracına13 gönderin (bkz. Malzemeler Tablosu). Moleküler ağırlığı, Topolojik polar yüzey alanını (TPSA), konsensüs logP'yi, hidrojen bağı donörlerini, hidrojen bağı akseptörlerini, dönebilir bağları, öngörülen gastrointestinal absorbsiyonu, P-glikoprotein tahminini ve Lipinski, Veber, Ghose, Egan, Muegge ve PAINS uyarılarını kaydedin.
- Yapı tanıma işlemi başarılı olan, moleküler ağırlığı ≤500 Da olan ve PAINS uyarısı bulunmayan metabolitleri saklayın. Karşılanmayan her kriteri ve metabolitin saklanması veya hariç tutulması kararını kaydedin.
- Aşağı akış hedef tahmini ve kenetlenmeden (docking) önce iyonizasyon durumlarını atayın. Bütirat ve propionat için deprotonasyona uğramış karboksilatları, safra asitleri için nötr karboksilik asit formlarını, triptamin için protonlanmış amonyumu ve kalan metabolitler için nötr formları kullanın.
3. Aday insan hedef tahmini
- Bir kimyasal-protein etkileşimi hedef tahmini 14 (bkz. Materyaller Tablosu) açın. Her bir metabolit adını veya PubChem CID'sini girin, Homo sapiens'i (taksonomi ID: 9606) seçin ve minimum kombine etkileşim skorunu ≥0,700 olarak ayarlayın.
- Kimyasal-protein etkileşimi hedef tahmininde deneysel ve küratörlü veri tabanı kanıt kanallarına öncelik verin. Her metabolit için protein-ilişkilendirme tablosunun tamamını indirin.
- Bir moleküler kenetlenme programı15 (bkz. Materyaller Tablosu) açın. Homo sapiens seçiliyken her bir kanonik SMILES dizisini gönderin ve olasılığı ≥0,70 olan hedefleri tutun.
- Kimyasal-protein etkileşimi hedef tahmini ve moleküler kenetlenme programı çıktılarını, her metabolit için bir birleşim kümesi olarak birleştirin. Herhangi bir veri tabanı eşiğini karşılayan tüm hedefleri tutun ve birebir aynı olan gen sembolü girişlerini kaldırın.
- Protein girişlerini, protein tanımlayıcılarını standartlaştırılmış HGNC onaylı gen sembollerine eşleyerek veya entegre insan gen bilgi veri tabanını kullanarak (bkz. Materyaller Tablosu) HUGO Gen Nomenklatürü Komitesi (HGNC) onaylı gen sembollerine göre standartlaştırın. Takma adları, güncelliğini yitirmiş sembolleri ve izoform açıklamalarını protein başına tek bir gen sembolü olacak şekilde çözün.
- Her bir hedefi membran reseptörü, nükleer reseptör, enzim, hücre içi sinyal protein, peptit hormon, hormonla ilişkili protein veya diğer hücre içi protein olarak sınıflandırın. Sınıfı hedef tablosuna kaydedin.
4. Transkriptomik veri seti ve diferansiyel gen ekspresyon analizi
- NCBI tabanlı diferansiyel gen ekspresyon analiz aracını kullanarak16,17 GSE36701'e erişin (bkz. Materyaller Tablosu). Veri setinin; IBS-C, diyare baskın irritabl bağırsak sendromu (IBS-D), post-enfeksiyöz IBS ve sağlıklı gönüllü gruplarına ait rektal mukozal biyopsi ekspresyon verilerini içerdiğini kaydedin18.
- Bağımsız bir doğrulama kohortu için GEO ve ArrayExpress'te arama yapın. IBS-C, konstipasyon baskın irritabl bağırsak sendromu, rektal mukoza, kolonik mukoza, biyopsi, transkriptom, mikroarray ve RNA-seq terim kombinasyonlarını kullanın. Depoları, arama terimlerini, arama tarihini ve karşılaştırılabilir bir doğrulama veri setinin tanımlanıp tanımlanmadığını kaydedin.
- GSE36701 kaydındaki web tabanlı diferansiyel gen ekspresyon analiz aracını başlatın (bkz. Materyaller Tablosu). 18 IBS-C örneğini IBS-C grubuna, 40 sağlıklı gönüllüyü kontrol grubuna atayın; IBS-D ve post-enfeksiyöz IBS örneklerini ise atanmamış olarak bırakın.
- Benjamini-Hochberg yanlış keşif oranı (FDR) düzeltmesi içeren19 diferansiyel gen ekspresyon analiz paketi çerçevesini kullanarak diferansiyel ekspresyon analizini gerçekleştirin. Prob ID'si, gen sembolü, gen başlığı, logFC, AveExpr, modere edilmiş t-statistiği, ham P-değeri ve düzeltilmiş P-değerini içeren sonuç tablosunun tamamını indirin.
- Probları gen düzeyindeki girdilere indirgeyin. Gen sembolü eksik olan probları çıkarın; yinelenen semboller için en düşük FDR'ye sahip probu tutun ve eşitlik durumunda mutlak değeri daha büyük olan logFC'yi belirleyici olarak kullanın.
5. Hedef-DEG örtüşme analizi ve istatistiksel değerlendirme
- Her bir metabolite özgü tahmin edilen hedef listesini, FDR < 0,05 olan gen düzeyindeki DEG listesi ile kesiştirin. Kesişen genleri, kaynak metaboliti, logFC değerini, düzeltilmiş P değerini ve ekspresyon yönünü kaydedin.
- Metabolite özgü kesişim listelerini, tekrarsız bir MAG listesinde birleştirin. Toplam tahmin edilen hedefleri, metabolite özgü kesişimleri ve toplam benzersiz MAG sayılarını belirleyin.
- Birden fazla proba sahip genler için prob düzeyinde yönsel tutarlılığı değerlendirin. Probların ekspresyon yönü konusunda uyuşmadığı herhangi bir geni işaretleyin.
- Toplam gen-çöktürülmüş girdileri, toplam DEG'leri, toplam benzersiz tahmin edilen hedefleri ve gözlemlenen MAG'ları kullanarak Fisher'ın kesin testi için kontingans tablosunu oluşturun. Fisher'ın kesin testi uygulaması ile tek kuyruklu P değerini, odds oranını ve %95 güven aralığını hesaplayın.
- Arka plan DEG oranı %50'yi aşarsa, kesişimi bağımsız olarak doğrulanmış bir zenginleştirme yerine tanımlayıcı olarak raporlayın. Ayrı bir yönsel test yapılmadıkça, tekdüze aşağı düzenlemeyi (downregulation) tanımlayıcı bir yönsel kalıp olarak değerlendirin.
6. Protein-Protein Etkileşim Ağı Analizi ve Yolak Zenginleştirme
- Tam ve benzersiz MAG listesini protein-protein etkileşim ağı oluşturma ve yolculuk zenginleştirme analizine20 gönderin (bkz. Materyal Tablosu). Homo sapiens'i seçin ve minimum etkileşim skorunu 0.700 olarak ayarlayın.
- Birleştirilmiş protein-protein etkileşim ağı oluşturma ve yolculuk zenginleştirme ağını ve tam etkileşim tablosunu dışa aktarın. Metin madenciliği yapay olarak yoğun bir topoloji oluşturursa, metin madenciliğinin seçimini kaldırın ve deneysel, ko-ekspresyon ve veri tabanı kanallarını tutun.
- SCFA ile ilişkili, safra asidi ile ilişkili ve triptamin/serotonerjik MAG'ler için metabolit sınıfı alt ağları oluşturun. Aynı protein-protein etkileşim ağı oluşturma ve yolculuk zenginleştirme organizma ve güvenilirlik ayarlarını kullanın.
- Kyoto Genler ve Genomlar Ansiklopedisi (KEGG)21, Reactome22 ve Gen Ontolojisi (GO) Biyolojik Süreç23,24 üzerinden protein-protein etkileşim ağı oluşturma ve yolculuk zenginleştirme analizini çalıştırın. Benjamini-Hochberg BH FDR <0.05 değerini uygulayın ve tüm zenginleştirme tablolarını dışa aktarın.
7. Moleküler kenetlenme
- Deneysel olarak belirlenmiş reseptör yapılarını Research Collaboratory for Structural Bioinformatics Protein Data Bank RCSB PDB'den25 alın (bkz. Malzeme Tablosu). Önceliklendirilen beş protein-ligand kompleksi için VDR/1DB1, NR1H4/FXR/3DCT, CASP3/2DKO ve HTR2A/6A93 yapılarını kullanın.
- Her bir reseptörü, A zincirini tutup suyu, ko-kristalize ligandları, kofaktörleri, iyonları ve protein dışı HETATM kayıtlarını kaldırarak hazırlayın. 6A93 için reseptör hazırlığından önce T4 lizozim füzyon segmentini kaldırın.
- Moleküler yapı araç takımıyla polar hidrojenleri ekleyin, Gasteiger yüklerini atayın ve her reseptörü PDBQT olarak kaydedin. PDBQT dönüştürmesinden önce bağlanma bölgesindeki histidin protonasyon durumlarını inceleyin ve seçilen durumları belgeleyin.
- Kimyasal yapı dosya dönüştürme araç takımında her bir ligandın 3D yapısını oluşturun. Universal Force Field (UFF) ile 500 adım boyunca enerji minimizasyonu yapın, pH 7.4 iyonizasyon durumunu atayın, Gasteiger yüklerini atayın ve PDBQT olarak kaydedin.
- Ko-kristalize ligand centroidü merkezli 25 Å x 25 Å x 25 Å boyutlarında bir docking kutusu tanımlayın. Merkez koordinatları olarak VDR için (10, 19, 33), FXR için (137, 31, 78), CASP3 için (37, 34, 32) ve HTR2A için (12, −1, 61) değerlerini kullanın.
- Metabolit ligandların hedef proteinlere26,27 moleküler docking işlemini exhaustiveness = 8, seed = 42, num_modes = 9 ve energy_range = 3 kcal/mol parametreleriyle gerçekleştirin. Tüm pozlar için en yüksek sıralamalı Vina skorunu ve Kök ortalama kare sapma (RMSD) değerlerini kaydedin.
- Her öncelikli kompleks için mod 1'i seçin. Bir moleküler görselleştirme ve iki boyutlu etkileşim diyagramı aracıyla iki boyutlu ligand-kalıntı diyagramlarını; üç boyutlu bir moleküler görselleştirme programıyla üç boyutlu reseptör-ligand görünümlerini oluşturun.
- VDR/1DB1 ve FXR/3DCT için redocking kontrollerini gerçekleştirin. Ağır atom RMSD değeri kristalografik poza göre <2.0 Å olduğunda reseptör docking kurulumunu kabul edin.
- Litokolik asidi (LCA) CASP3'e ve triptamini VDR'ye dock ederek cross-docking kontrollerini gerçekleştirin. Kognat ve non-kognat skorları karşılaştırın ve skor farkının <1.0 kcal/mol olduğu durumları kaydedin.
8. Moleküler dinamik simülasyonu
- CHARMM uyumlu ligand parametrelendirme servisiyle28 (Materyaller Tablosuna bakınız) ligand parametrelerini oluşturun. Tüm ceza skorlarını inceleyin ve cezası 50'den büyük olan > her parametreyi işaretleyin.
- Ligand stream dosyalarını, kuvvet alanı topoloji dönüştürme betiği ile moleküler dinamik motoruyla uyumlu .itp ve .prm dosyalarına dönüştürün. Her kompleks için ligand ve protein topoloji dosyalarını birleştirin.
- Moleküler topoloji ve parametre dönüştürme kütüphanesi ile hidrojen kütle yeniden dağılımını (hydrogen mass repartitioning) uygulayın. Moleküler dinamik simülasyonları için kullanılan protein kuvvet alanı29 ve açık üç bölgeli su modeli30 ile sulu topolojiler oluşturun.
- Sulu kompleksleri, çözücü kenar boşluğu en az 1,2 nm olan dodekahedral bir kutu içinde çözünürleştirin. Sistemleri nötrleyin ve 0,15 M olacak şekilde NaCl ekleyin.
- Web tabanlı bir membran sistemi oluşturma aracıyla31,32,33 (Materyaller Tablosuna bakınız) tryptamine-HTR2A membran sistemini kurun. Membran-protein oryantasyon veri tabanıyla hizalanmış reseptör koordinatlarını34 (Materyaller Tablosuna bakınız), saf bir POPC çift katmanını, 22,5 Å su katmanlarını ve 0,15 M NaCl kullanın.
- Tüm sistemlerin enerjisini en dik iniş (steepest descent) yöntemiyle 50.000 adıma kadar minimize edin. Dengeleme öncesinde Fmax <1000 kJmol-1nm-1 değerinde yakınsamayı doğrulayın.
- Sulu sistemleri Sabit parçacık sayısı, hacim ve sıcaklık topluluğu (NVT) ve Sabit parçacık sayısı, basınç ve sıcaklık topluluğu (NPT) evreleri ile dengeleyin. Membran sistemini, kısıtlamaların kademeli olarak kaldırıldığı altı adımlı, web tabanlı, çok aşamalı moleküler sistem hazırlama ve dengeleme iş akışını kullanarak dengeleyin.
- Beş kompleksin tamamı için 200 ns üretim MD simülasyonu gerçekleştirin. Hidrojen kütle yeniden dağılımı (HMR) ile 4 fs zaman adımı, 310 K'de V-rescale termostat, 1 bar'da Parrinello-Rahman barostat, Particle mesh Ewald (PME) elektrostatikleri35 ve LINCS kısıtlamaları36 kullanın.
- Final trajektorilerini moleküler dinamik trajektori analiz araçlarıyla analiz edin. Son 150 ns'yi birincil analiz penceresi olarak kullanarak ana zincir RMSD, Cα Kök ortalama kare dalgalanma (RMSF), jirasyon yarıçapı, Çözücüye erişilebilir yüzey alanı (SASA) ve protein-ligand hidrojen bağlarını hesaplayın.
9. MM-PBSA bağlanma serbest enerjisi kestirimi
- MM-PBSA analizi için yörünge anlık görüntülerini çıkarın. Her bir sulu kompleks için 2.001 kare ve membrana gömülü HTR2A alt sistemi için işlenmiş 201 kare kullanın.
- Poisson-Boltzmann solvasyonu, iç dielektrik sabiti = 1, dış dielektrik sabiti = 80, SASA tabanlı apolar solvasyon ve entropi düzeltmesi olmaksızın moleküler mekanik/sürekli-çözücü bağlanma enerjisi hesaplama aracını37 çalıştırın. Ortalama bağlanma serbest enerjisini ve standart sapmayı raporlayın.
- Beş kompleksin tamamı için kalıntı başına ayrıştırma gerçekleştirin. Mutlak katkıları ≥0,5 kcalmol−1 olan stabilize edici ve destabilize edici kalıntıları raporlayın.
Sonuçlar
Aday metabolit ilişkili hedefler
Dokuz metabolit, bir kimyasal-protein etkileşim hedef tahmini ve bir moleküler kenetlenme programı genelinde heterojen öngörülen hedef setleri üretmiştir. Propiyonat, triptamin, safra asitleri ve urolithin A, gastrointestinal sinyalizasyonla ilişkili olduğu bilinen birkaç hedef ortaya çıkarmıştır. Tahmin edilen hedef manzarası; kanonik membran reseptörlerini, nükleer reseptörleri, hücre içi enzimleri, sinyalizasyon proteinlerini ve peptit hormonla ilişkili proteinleri içermiştir. Bu nedenle, aşağı akış sonuçları, yalnızca reseptör bulguları yerine metabolite ilişkili genler (MAG'lar) olarak tanımlanmıştır (Tablo 1).
Rapor edilen metabolit-protein etkileşimlerine karşı kıyaslama
Hedef tahmin çıktısını mevcut deneysel bilgilerle karşılaştırmak için, tahmin edilen metabolit ilişkili hedef ilişkileri üç kanıt düzeyine ayrılmıştır: (i) metabolitin veya yakından ilişkili endojen bir metabolitin, kodlanan proteini bağladığı, aktive ettiği, inhibe ettiği veya fonksiyonel olarak düzenlediğinin rapor edildiği, deneysel olarak desteklenen doğrudan veya yakın sınıf düzeyindeki metabolit-protein etkileşimleri; (ii) tahmin edilen hedefin yerleşmiş bir metabolit-duyarlı yolağa veya reseptör ailesine ait olduğu ancak kesin metabolit-protein çifti için doğrudan kanıtın sınırlı olduğu, yolak veya hedef sınıfı destekli etkileşimler ve (iii) incelenen literatürde herhangi bir doğrudan deneysel etkileşime rastlanmayan, yalnızca hesaplamalı ilişkilendirmeler. Bu karşılaştırma, tahmin edilen MAG'ları doğrulamak için değil, bağlama oturtmak için kullanılmıştır.
Birçok öngörü, daha önce raporlanmış biyolojik bulguları tekrarlamıştır. FFAR2/GPR43 kanonik bir kısa zincirli yağ asidi reseptörü olduğu için Propiyonat-FFAR2 etkileşimi deneysel olarak desteklenen bir durum olarak değerlendirilmiştir. Butirat tanınmış bir histon deasetilaz inhibitörü olduğu ve öngörülen örtüşme bir HDAC ailesi üyesini içerdiği için Butirat-HDAC3, deneysel veya sınıf düzeyinde desteklenen bir etkileşim olarak sınıflandırılmıştır. NR1H4/FXR ve VDR'yi içeren safra asidiyle ilişkili öngörüler, özellikle LCA gibi hidrofobik safra asitleri için yerleşik safra asidi nükleer reseptör biyolojisi tarafından desteklendiği kabul edilmiştir; Ursodeoksikolik asit (UDCA) ile ilişkili FXR öngörüleri, UDCA'nın genellikle daha zayıf veya bağlama bağımlı bir FXR ligandı olması nedeniyle ihtiyatla yorumlanmıştır. Triptaminle ilişkili HTR1B, HTR2A, HTR2B ve HTR6 öngörüleri, triptaminin mikrobiyal triptofan türevli bir monoamin olması ve serotonin reseptörlerinin gastrointestinal motilite ve sekresyonun yerleşik düzenleyicileri olması nedeniyle, doğrudan reseptöre özgü etkileşimler olarak onaylanmak yerine serotonerjik yolak destekli olarak sınıflandırılmıştır. Urolithin A-CASP3 etkileşimi, urolithin A ile apoptotik/kaspazla ilgili yanıtlar arasındaki yayınlanmış bağlantılar nedeniyle yolak destekli olarak kabul edilmiş, ancak CASP3 bağlanmasına dair doğrudan kanıtlar temel alınmamıştır. İndol-3-laktik asit-KYAT1 ve indol-3-propiyonik asit-KYAT1 etkileşimleri, literatür mikrobiyal indol türevlerinin konak sinyalizasyonunu desteklediği ancak bu spesifik metabolitlerin doğrudan KYAT1 bağlanmasını desteklemediği için yalnızca hesaplama temelli hipotezler olarak tutulmuştur7,8,38,39,40.
Buna göre, Tablo 1 hesaplamalı hedef aday belirlemesini, önceden mevcut olan deneysel veya yolak desteği düzeyine göre ayırmaktadır. Ayrıca her bir hedef için tahmin kaynağını (bir kimyasal-protein etkileşimi hedef tahmini, bir moleküler kenetlenme programı veya her ikisi), kimyasal-protein etkileşimi hedef tahmini için birleştirilmiş etkileşim skorunu ve hedefin bir moleküler kenetlenme programı ile tanımlandığı durumlarda moleküler kenetlenme programı olasılığını sunmaktadır. Doğrudan önceden deneysel kanıtı olmayan tahmin edilen hedefler, bağımsız protein düzeyi ve ligand yanıt doğrulaması gerektiren aday metabolit ilişkili genler olarak tanımlanmıştır.
Öngörülen hedefler ile IBS-C diferansiyel eksprese edilen genleri arasındaki örtüşme
Birleştirilmiş öngörülen hedef listelerinin kesişimi ve gen düzeyindeki diferansiyel ekspresyon sonuçları, IBS-C ile sağlıklı gönüllü karşılaştırmasında anlamlı derecede diferansiyel ekspresyon gösteren 17 benzersiz öngörülen metabolit ilişkili geni belirlemiştir. 17 genin tamamı downregüle olmuştur. Bu set, membran ve nükleer reseptörleri (CASR, FFAR2, GPR68, HTR1B, HTR2A, HTR2B, HTR6, NR1H4, TBXA2R, VDR) ve reseptör olmayan proteinleri (CASP3, GCG, GNAQ, GPHN, HDAC3, KYAT1, MLN) içermektedir (Tablo 1, Şekil 2A,B).
17 MAG'ın tamamı 0,05'in altındaki bir yanlış keşif oranı (FDR) eşiğini karşılamıştır; 17'den 16'sı daha sıkı olan FDR < 0,01 kriterini karşılamış, geri kalan gen (HTR1B) ise FDR < 0,05 değerinde anlamlı bulunmuştur. 17 hedeften yedisi (CASP3, GCG, GNAQ, GPHN, GPR68, HDAC3, TBXA2R), hem FDR < 0,01 kriterini hem de 1,0'ı aşan mutlak log2 kat değişimi (logFC aralığı −1,34 ile −1,10) kriterini karşılamış olup bu alt küme için güçlü ve tutarlı bir downregulasyon göstermiştir. Geri kalan hedefler orta düzeyde ancak istatistiksel olarak anlamlı downregulasyon sergilemiştir (|logFC| aralığı 0,45 ile 0,97 arası). Bu tekdüze tanımlayıcı örüntü, veri setinin genom genelindeki ekspresyon özellikleri göz önünde bulundurularak ihtiyatla yorumlanmıştır (aşağıdaki istatistiksel değerlendirmeye bakınız).
Hedef DEG örtüşmesinin istatistiksel değerlendirmesi
17 genli örtüşmenin istatistiksel anlamlılığını resmi olarak değerlendirmek için, öngörülen 17 hedef gen sorgu seti ve GSE36701'de tespit edilen tüm 18.296 benzersiz gen-çöktürülmüş giriş genomik arka plan olarak kullanılarak tek kuyruklu Fisher'in kesin testi uygulanmıştır. Bu arka planın 17.296 geni (%94,5), FDR < 0,05 düzeyinde diferansiyel olarak eksprese edilmiş olup, bu durum IBS-C rektal mukoza karşılaştırmasında neredeyse evrensel bir transkripsiyonel baskılamayı yansıtmaktadır. Öngörülen 17 hedef genin tamamı diferansiyel eksprese edilen genler arasındaydı (gözlenen örtüşme 17/17, %10). %94,5'lik arka plan diferansiyel ekspresyon oranı göz önüne alındığında, rastgele seçilen herhangi bir 17 genli set için beklenen örtüşme 16,1 gendir. Fisher'in kesin testi, 2,03'lük süreklilik düzeltmeli bir odds oranıyla ( %95 güven aralığı 0,12–3,73) p = 0,384 sonucunu vermiş olup bu değer α = 0,05 düzeyinde istatistiksel olarak anlamlı bulunmamıştır (Şekil 3A–C).
Bu sonuç, gözlemlenen 17/17 örtüşmesinin, bu veri setinin genom genelindeki ekspresyon profili altında şans eseri beklenen örtüşmeyi aşmadığını göstermektedir. Buna göre, bu bulgular, genomik bir arka plan üzerinden istatistiksel zenginleşme veya bağımsız doğrulama kanıtı olarak değil; tahmin edilen 17 hedefin tamamının IBS-C rektal mukoza dokusunda tutarlı ve anlamlı şekilde downregüle olduğu tanımlayıcı bir yönelimsel patern olarak yorumlanmıştır. Formal zenginleşme testi, tüm genlerin yarısından çok daha azının anlamlılık düzeyine ulaştığı, daha seçici diferansiyel ekspresyon profillerine sahip transkriptomik veri setlerinde tekrarlanmasını gerektirecektir. Örtüşen 17 genin tamamının tek tip downregülasyonu, ayrı doğrulanmış istatistiksel bir sonuçtan ziyade tanımlayıcı bir gözlem olduğunun vurgulanması gerekir; çünkü bu veri setinin diferansiyel ekspresyon arka planı kendisi ağırlıklı olarak downregüle olduğundan, örtüşen genler arasında paylaşılan aşağı yönlü bir eğilim beklenmektedir ve formal bir yönelimsellik testine tabi tutulmamıştır. Bu nedenle, söz konusu tek tip yönelim, koordineli ve metabolite özgü regülasyona dair bağımsız bir istatistiksel kanıt olarak yorumlanmamalıdır.
Metabolite spesifik paternler
Propionat; CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN ve TBXA2R dahil olmak üzere en fazla örtüşen gen sayısına sahipti ve bu durum, kısa zincirli yağ asidiye duyarlı ve Gq ile ilişkili sinyalleşmenin olası katılımına işaret etmektedir. Bütirat, bütirat ile ilişkili histon deacetylaz biyolojisiyle uyumlu şekilde HDAC3 ile örtüşmüştür; ancak tek başına mRNA aşağı regülasyonu, değişmiş bütirat duyarlılığını kanıtlamaz. Safra asidi ile ilişkili örtüşmeler, bağırsakta safra asidi sinyalleşmesinin tanınmış efektörleri olan VDR ve NR1H4 nükleer reseptörlerini içermekteydi38,39. Triptamin; HTR1B, HTR2A, HTR2B ve HTR6 ile örtüşerek, gastrointestinal motilite ve sekresyonda rolleri iyi tanımlanmış bir sistem olan serotonerjik sinyalleşmeyi aday bir modül olarak ortaya koymuştur40. İndol-3-laktik asit ve indol-3-propionik asit KYAT1 ile, urolithin A ise CASP3 ile örtüşmüştür.
Yolak zenginleştirme
Saptanan 17 örtüşen genin fonksiyonel zenginleştirme analizi; G proteini kenetli reseptör (GPCR) aşağı akış sinyalizasyonu, Gαq sinyalizasyonu, GPCR ligand bağlanması, serotonerjik sinaps, nöroaktif ligand-reseptör etkileşimi, kalsiyum sinyal iletimi, cAMP sinyalizasyonu ve peptid hormon salgılanması ile ilgili yolakları tanımlamıştır. Bu sonuçlar, gen setinin bileşimiyle tutarlıdır ve biyolojik tutarlılığını desteklemektedir; ancak bunlar, yolak düzeyindeki aktiviteye dair bağımsız kanıtlardan ziyade, sunulan genlerin fonksiyonel anotasyonunu yansıtmaktadır.
Protein-protein etkileşim ağı yapısı
Protein-protein etkileşim ağı oluşturma ve yol zenginleştirme analizi, birbirini tamamlayan üç ağ üzerinden yorumlanmıştır. Birleştirilmiş 17 genli meta-ağda (Ağ 1), anotasyonla desteklenen en belirgin yapı; GNAQ'yi TBXA2R, CASR, HTR2A ve HTR2B dahil olmak üzere reseptörle ilişkili genlere bağlayan, GNAQ merkezli bir GPCR/Gαq sinyal bileşeniydi. Sınırlı serotonin reseptörü bağlantısallığı, en belirgin şekilde HTR2A ve HTR2B arasında korunurken, diğer birkaç gen seçilen güven eşiğinde izole kalmış veya zayıf şekilde bağlanmıştır. Propiyonat spesifik ağı (Ağ 2), GNAQ'nun CASR ve TBXA2R ile anotasyon destekli bağlantılarını koruduğu, ancak FFAR2, GPR68, GCG, GPHN ve MLN'nin izole olduğu veya zayıf bağlandığı daha kısıtlı bir topoloji göstermiştir. Triptamin/serotonin ağı (Ağ 3); HTR1B, HTR2A, HTR2B ve HTR6'yı içermiştir; bu alt küme içerisinde HTR2A ve HTR2B temel anotasyon destekli bağlantıyı gösterirken, HTR1B ve HTR6 seçilen eşikte doğrudan bağlanmamıştır (Şekil 4A–C).
Moleküler kenetleme
Beş seçilmiş metabolit-protein kompleksi üzerinde moleküler kenetleme gerçekleştirildi. Safra asidi-nükleer reseptör çiftleri, urolithin A-CASP3 ve tryptamine-HTR2A'ya göre daha elverişli Vina skorları sergiledi. En iyi skor −10.0 kcal/mol ile LCA-VDR'ye aitken, bunu LCA-NR1H4/FXR (−9.9 kcal/mol) ve UDCA-NR1H4/FXR (−9.4 kcal/mol) takip etti. Urolithin A-CASP3 ve tryptamine-HTR2A, daha düşük ancak yine de makul olan −7.1 kcal/mol skorlara sahipti (Tablo 2).
LCA-VDR kompleksi (PDB ID: 1DB1) için, öngörülen poz, LCA karboksilat oksijeni ile Ser278 arasındaki konvansiyonel bir hidrojen bağı (4.29 Å) ile birlikte Leu230, Val234, Trp286, Val30, His305, Tyr295, Leu23 ve His397'yi içeren kapsamlı hidrofobik temaslar ve Met272, Leu313, Ile271, Ile268, Leu309, Phe42, Val418, Ala231, Ala303, Cys28, Ser275 ve Phe150 ile ek van der Waals temasları tarafından desteklenmiştir. En üst sırada yer alan pozun Vina skoru −10.0 kcal/mol, boşluk hacmi 205 Å3 ve ızgara merkezi (10, 19, 3) olarak belirlenmiştir (Tablo 3, Şekil 5A,B).
LCA-NR1H4/FXR kompleksi (PDB ID: 3DCT) için, −9.9 kcal/mol değerindeki docking skoruyla birlikte His294 ve Ile335'i içeren öngörülen hidrojen bağları, His294 ile bir π-Sigma etkileşimi ve Met290, Met328, Ala291, Leu287, Ile352 ile His47'yi içeren hidrofobik Alkil veya π-Alkil temasları görülmüş; ayrıca steroidal iskeletin FXR cebine yerleşimini destekleyen van der Waals temasları tespit edilmiştir (Tablo 4, Şekil 6A,B).
UDCA-NR1H4/FXR kompleksinin (PDB ID: 3DCT) öngörülen pozu, His47 (3,6 Å) ile konvansiyonel bir hidrojen bağı, Gly32 (3,46 Å) ile başka bir hidrojen bağı, Val325 (4,96 Å) ile bir π-Anyon etkileşimi ve Trp469 (4,51 Å) ile bir karbon-hidrojen bağı göstermiştir. Etkileşim haritası ayrıca Arg395 (3,89 Å) ve Gln396 (3,40 Å) ile elverişsiz donör-donör temaslarını tanımlamış olup, bu durum aynı reseptör cebinde UDCA'nın LCA'ya kıyasla daha düşük Vina skorunun, daha az elverişli yerel geometriye veya elektrostatiklere bağlı olabileceğini önermektedir (Tablo 5, Şekil 7A,B).
urolithin A-CASP3 kompleksinde (PDB ID: 2DKO), öngörülen bağlanma modu Gln161 (3.78 ve 4.19 Å), Ser120 (3.95 Å) ve Arg207 (3.05 ve 3.7 Å) ile geleneksel hidrojen bağlarını içermekteydi; ayrıca Arg207 ile π-Kation etkileşimleri, Cys163 ile bir π-Donör hidrojen bağı ve Arg64, Ala162, His121, Ser205 ve Trp206'yı içeren ek π-Alkil ve van der Waals temasları ile stabilize edilmişti (Tablo 6, Şekil 8A,B).
Triptamin-HTR2A kompleksi (PDB ID: 6A93) için tahmin edilen poz; triptaminin protonlanmış amini ile, serotonin ve ilgili reseptörler genelinde aminerjik ligandların protonlanmış aminini sabitleyen korunmuş transmembran heliks 3 aspartatı (Ballesteros-Weinstein numaralandırmasında D3.32) olan Asp15 arasındaki elektrostatik bir tuz köprüsü ile stabilize edilmiştir.41,42,43Thr160 ve Ser159 ile hidrojen bağları, Phe340 ve Trp36 ile aromatik temaslar ve Val156 ile Ile163 ile $\pi$-Alkil etkileşimlerinin yanı sıra; Tyr370, Phe339, Ser242, Phe243, Phe32 ve Leu123 ile olan ek van der Waals temasları ortosterik cep-bağlanma paternini desteklemiştir (Tablo 7, Şekil 9A,B).
Kenetlenme protokolü doğrulaması
Kenetleme protokolünün güvenilirliğini değerlendirmek için iki tamamlayıcı kontrol deneyi gerçekleştirilmiştir. Yeniden kenetleme (pozitif) kontrolleri için, ko-kristalize ligandlar referans X-ışını yapılarından çıkarılmış ve doğal bağlanma bölgelerine yeniden kenetlenmiştir. VDR/1DB1 yapısındaki vitamin D analoğu VDX için en yüksek sıralamaya sahip öngörülen poz, kristalografik konumdan 0.87 Å sapma göstermiş ve FXR/3DCT yapısındaki ko-kristal ligand WAY-362450 1.79 Å sapma göstermiştir; her iki değer de geleneksel 2.0 Å kabul eşiğinin altında kalmış olup, bu durum bu reseptör sistemleri için kenetleme protokolünün geometrik geçerliliğini desteklemektedir (Şekil 10A,B). Çapraz kenetleme (negatif) kontrolleri için, litokolik asit, kendisi için bilinen bir ligand olmadığı bir kistein proteaz olan caspase-3'e (2DKO) kenetlenmiş ve kendi bilişsel hedefi VDR'ye (−10.0 kcal/mol) kıyasla 1.7 kcal/mol daha zayıf bir öngörülen skor (−8.3 kcal/mol) vermiştir; bu durum öngörülen bağlanma bölgesi seçiciliği ile uyumludur. VDR'ye kenetlenen triptamin, kendi bilişsel HTR2A hedefindeki −7.1 kcal/mol değerine kıyasla −6.4 kcal/mol öngörülen skor vermiş olup, 0.7 kcal/mol'lik bu fark, metabolit ligandların hedef proteinlere yönelik moleküler kenetleme skorları için rapor edilen belirsizlik sınırları içindedir ve dolayısıyla bu daha küçük ligand için yalnızca düşük bir öngörülen seçiciliğe işaret etmektedir (Şekil 10C). Topluca değerlendirildiğinde, bu kontroller, kenetleme protokolünün bilinen bağlanma geometrilerini yeniden ürettiğini ve test edilen koşullar altında bilişsel olanlar ile olmayan çiftleri ayırt edebildiğini, ancak deneysel afinite ölçümlerinin yerini tutmayan hesaplamalı öngörüler olarak kaldığını göstermektedir (Tablo 8).
Moleküler dinamik simülasyonu
Önceliklendirilen beş kompleks için 20 ns'lik üretim trajektörleri üzerinden moleküler dinamik simülasyonları tamamlanmıştır. Dört çözünür ve nükleer reseptör kompleksi açık sulu çözücüde simüle edilirken, triptamin-HTR2A kompleksi, bu G proteini kenetli reseptörü için fizyolojik olarak uygun bir membran ortamı sağlamak amacıyla açık bir POPC lipid çift katmanında simüle edilmiştir. Analizler, kenetlenmiş pozların zamana bağlı koşullar altındaki dinamik stabilitesini test etmiş ve kompleksler arasındaki göreceli yapısal davranışın karşılaştırılmasına olanak sağlamıştır (Tablo 9).
LCA-VDR/1DB1 kompleksinin RMSD profili, ilk 10 ns boyunca kısa bir dengeleme dönemi ve ardından, dalgalanmaların temel olarak 0,20–0,28 nm aralığında olduğu stabil bir plato göstermiştir (Şekil 1A). RMSF değerleri düşük çıkmış ve çoğu kalıntı için ana zincir dalgalanmaları < 0,15 nm olarak kaydedilmiştir (Şekil 1B). Hidrojen bağı analizi, zaman 7'ye yükselen, ancak genel olarak 2–5 hidrojen bağından oluşan kalıcı bir ağ göstermiştir (Şekil 1C). Jirasyon yarıçapı (Rg) 1,25–1,75 nm aralığında, çözücüye açık yüzey alanı (SASA) ise 130 nm2 civarında tutulmuştur (Şekil 1D,E).
urolithin A-CASP3/2DKO kompleksi daha yüksek dinamik aktivite göstermiştir. RMSD başlangıçta artmış ve ardından 165 ns civarında kısa süreli yüksek sapma olayıyla birlikte 0,4 ile 0,7 nm arasında dalgalanmıştır (Şekil 12A). RMSF analizi, kalıntı düzeyinde yüksek mobilite göstermiş olup en büyük dalgalanmalar 175. kalıntı civarındaki esnek loop bölgesinde gözlemlenmiştir (Şekil 12B). Hidrojen bağı analizi, ilk 30–40 ns boyunca yaklaşık 2–5 bağdan oluşan başlangıçta kapsamlı bir ağ, ardından çoğunlukla 0 ila 2 arası kesikli bağlar ortaya çıkarmıştır (Şekil 12C). Karşılık gelen jiro-yarıçap ve SASA profilleri Şekil 12D,E'de gösterilmiştir.
NR1H4/FXR (3DCT) safra asidi sistemleri için, ana iskelet RMSD profili yörüngenin büyük bir kısmında nispeten dar bir aralıkta kalırken (Şekil 13A), RMSF profili çekirdek bölgelerde daha düşük mobilite ve esnek bölgelerde daha yüksek dalgalanmalar göstermiştir (Şekil 13B). LCA-3DCT kompleksi yörünge boyunca yaklaşık üç ila dört kalıcı hidrojen bağı sürdürmüştür; buna karşılık UDCA-3DCT kompleksi, daha büyük hidrojen bağı dalgalanması göstermiş ve yaklaşık 125 ns'den sonra hidrojen bağlarında azalma meydana gelmiştir. LCA ve UDCA bağlı sistemler için jiro yarıçapı profilleri sırasıyla Şekil 13C,D'de, ilgili SASA profilleri ise Şekil 13E,F'de gösterilmiştir.
Triptamin-HTR2A kompleksinin membran moleküler dinamiği
Triptamin-HTR2A/6A93 kompleksi; 258 lipid molekülünden oluşan açık bir POPC lipid çift tabakası, açık üç bölgeli bir su modeli ve 0.15 M NaCl içeren, toplam sistem boyutu yaklaşık 10.925 atom olan bir ortamda 20 ns boyunca simüle edilmiştir3,4,45. Reseptör, tüm trajektör boyunca çift tabakaya stabil bir şekilde gömülü kalmıştır (Şekil 14). Omurga RMSD değeri, ilk 10 ns içinde yaklaşık 0,10 nm'den 0,15–0,20 nm civarında stabil bir platoya yükselmiş ve sonrasında tüm değerler 0,25 nm'nin altında kalarak stabil seyretmiştir; bu durum, reseptörün membran ortamında küresel bir açılma olmadan stabil bir konformasyonu koruduğunu göstermektedir (Şekil 15A). Kalıntı başına RMSF, tipik GPCR esnekliği ile uyumlu olarak, transmembran heliks çekirdeğinde düşük dalgalanmalar, loop ve terminal bölgelerde ise beklenen daha yüksek mobilite göstermiştir (Şekil 15B). Jiro yarıçapı yaklaşık 2,06 ve 2,12 nm arasında sıkı bir şekilde sınırlanmış, SASA ise progresif bir kayma olmaksızın dar bir bantta dalgalanmıştır; her iki veri de kompakt transmembran demetinin korunduğunu doğrulamıştır (Şekil 15C,D).
Protein ve ligand arasındaki hidrojen bağları tüm trajektör boyunca korundu (Şekil 15E) ve hidrojen bağlarının sayısı 1 ile 3 arasında önemli dalgalanmalar gösterdi. Temel iyonik etkileşimin kalıcılığını spesifik olarak değerlendirmek için, tryptamine'in protonlanmış amonyum azotu ile Asp15 (D3.32) karboksilat oksijen atomları arasındaki minimum mesafe tüm trajektör boyunca izlendi. Bu mesafe, 0,270 nm ortalama etrafında dar bir dağılım sergiledi (minimum 0,247 nm, maksimum 0,424 nm) ve tuz köprüsü teması (< 0,4 nm), yalnızca iki kısa süreli geçici sapma ile simülasyonun %9,9'u boyunca korundu; hiçbir kalıcı ayrılma olayı gözlemlenmedi (Şekil 16). Bu sonuçlar, korunmuş Asp15 iyonik etkileşiminin, membran simülasyonu boyunca tryptamine'i HTR2A ortosterik cebi içerisinde stabilize etmek için yeterli olduğunu göstermektedir.
MM-PBSA bağlanma serbest enerjisi ve kalıntı başına ayrıştırma
Beş komplekse ek bir enerjik önceliklendirme katmanı eklemek amacıyla MM-PBSA analizi gerçekleştirilmiştir (Tablo 10). Dört sulu kompleks için kalıntı başına ayrıştırma, tahmin edilen her bir bağlanma modu için ana enerjik katkıları belirlemiştir. LCA-VDR/1DB1 kompleksinde, ligand ve Gln317'nin uygun bir katkısı varken, Trp286'nın uygun olmayan bir katkısı vardı. Urolithin A-CASP3/2DKO kompleksinde, Arg64 ve Arg207 güçlü negatif kalıntı başına katkılar göstermiş olup, bu durum önemli polar veya elektrostatik stabilizasyona işaret etmiştir; buna rağmen, ilgili trajektori oldukça dinamik kalmaya devam ederek, tek başına uygun kalıntı seviyesindeki enerjilerin sürdürülebilir kompleks stabilitesini garanti etmediğini göstermiştir. 3DCT sistemleri için LCA bağlanması öncelikle Arg331 tarafından yönlendirilirken, UDCA bağlanması Glu326, Asp394, Arg395, Arg41 ve Asp470'ten oluşan daha dağıtılmış bir enerjik ağ içeriyordu. Dört sulu sistem genelinde, MM-PBSA ayrıştırması LCA tabanlı komplekslerin göreceli önceliklendirmesini desteklemiştir.
Membrana gömülü tryptamine-HTR2A/6A93 kompleksi için MM-PBSA analizi, çift katmanlı trajektoryadan çıkarılan protein-ligand alt sistemine uygulanmıştır46,47. Hem kenetleme hem de trajektorya mesafe analizlerinde tanımlanan tuz köprüsü etkilemiyle tutarlı olarak, ligand ve açık ara en baskın kalıntı düzeyindeki stabilize edici katkı sağlayıcı olan Asp15 (D3.32) için uygun katkılar gözlemlenmiştir. Trp137, bağlanma cebini çevreleyen aromatik ve polar temas ağını birlikte oluşturan çevre ortosterik cep kalıntıları (Ser86, Phe87, Phe13, Phe140, Phe141, Val156, Ser159, Thr160, Ile163, Val167, Tyr171) arasında en büyük olumsuz kalıntı başına katkıyı göstermiştir. Bu değerler, yapısal önceliklendirme için göreceli hesaplamalı tahminleri temsil etmektedir ve deneysel bağlanma afiniteleri değildir.
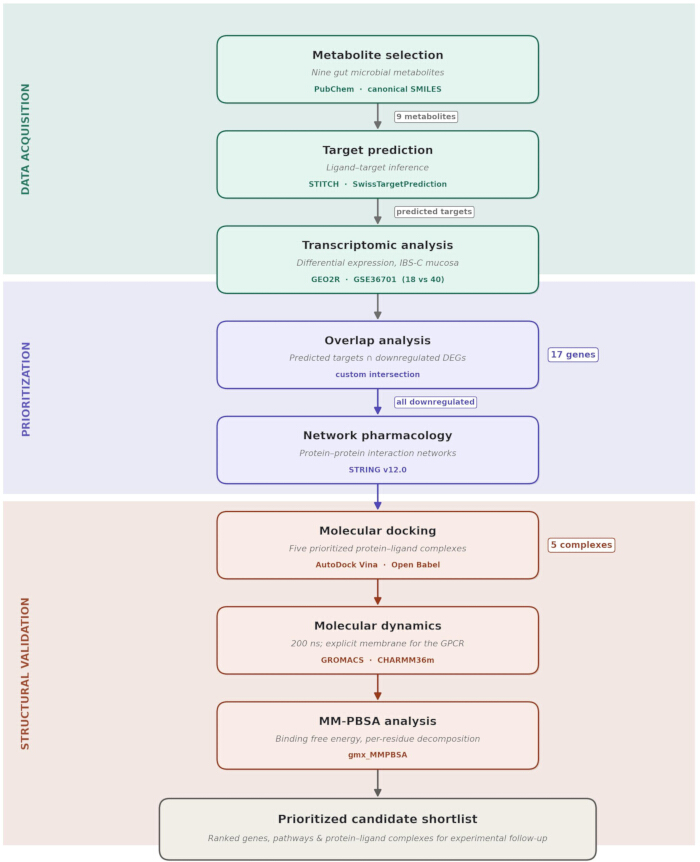
Şekil 1IBS-C'de metabolit ilişkili konak gen önceliklendirmesi için hesaplamalı iş akışı. Metabolit seçimi, hedef tahmini, transkriptomik diferansiyel ekspresyon, örtüşme analizi, ağ ve yolak zenginleştirme, moleküler kenetleme, moleküler dinamik simülasyonu ve MM-PBSA bağlanma serbest enerjisi analizini entegre eden sekiz aşamalı iş akışının şematik gösterimi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
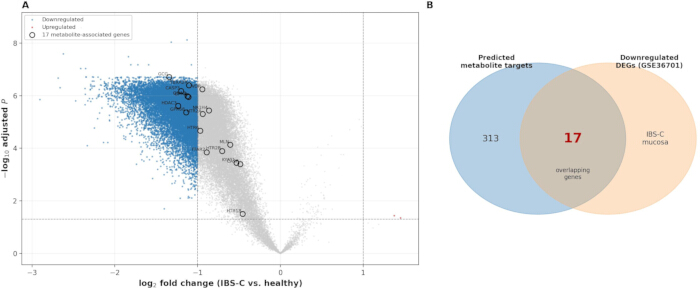
Şekil 2IBS-C mukozasında diferansiyel ekspresyon ve metabolit-hedef örtüşme analizi. (A) GSE36701'deki gen düzeyindeki diferansiyel ekspresyonun volkan grafiği. Mavi noktalar, anlamlı derecede downregüle olmuş genler; kırmızı noktalar, anlamlı derecede upregüle olmuş genler; gri noktalar, anlamlı olmayan genlerdir. Seçilen örtüşen metabolit ilişkili genler etiketlenmiştir. (B) 30 benzersiz öngörülen metabolit hedefi ile GSE36701'deki aşağı regüle edilmiş genler arasındaki örtüşmeyi gösteren Venn şeması; 17 gen ortaktır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
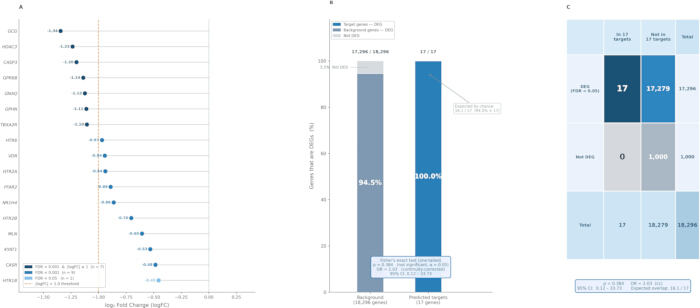
Şekil 317 öngörülen metabolit hedef geninin GSE36701'e karşı istatistiksel değerlendirmesi. (A) Tüm 17 gen için, anlamlılık düzeyine göre renklendirilmiş gen başına log2 kat değişimi. (B) Fisher's kesin testi ile öngörülen hedeflere karşı arka plan genlerinin diferansiyel ekspresyon oranı. (CFisher'in kesin testi için iki kere ikiylek bir contingency tablosu kullanılmıştır. 17 hedefle birlikte tamamı anlamlı derecede downregulated olmuştur; örtüşme, istatistiksel bir zenginleşmeden ziyade tanımlayıcı bir yönelimsel örüntü olarak yorumlanmaktadır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
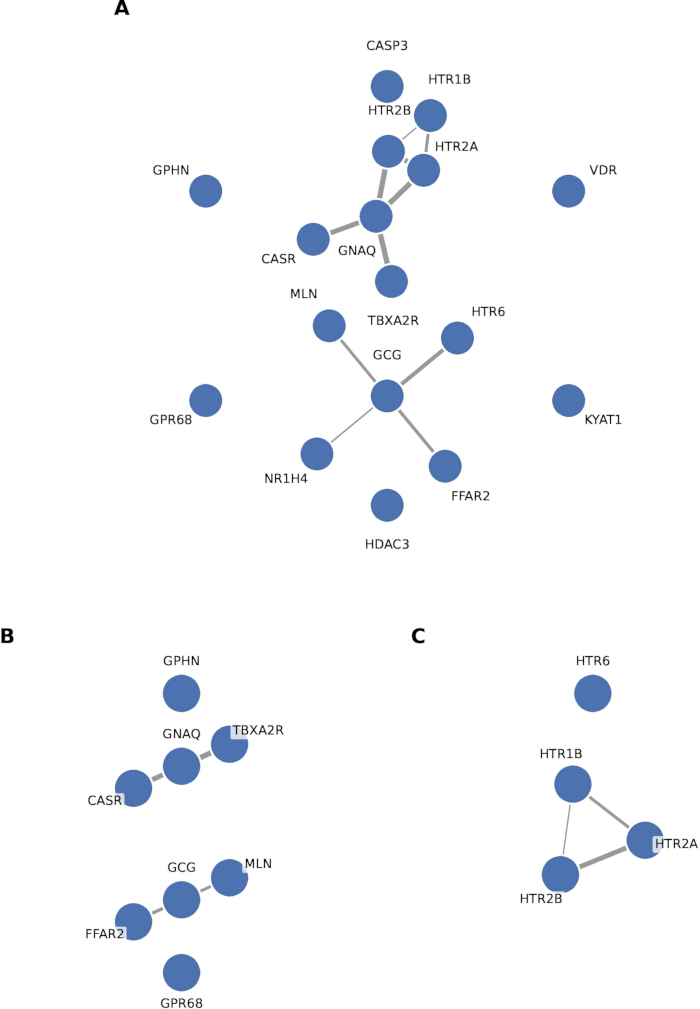
Şekil 4Kompozit protein-protein etkileşim ağı oluşturma ve örtüşen metabolit ilişkili genlerin protein-protein etkileşim ağlarının yol zenginleştirme analizi. (A) Ağ 1: 17 genin tamamından oluşan birleştirilmiş meta-ağ. (B) Ağ 2: sekiz genden oluşan propionat-özgü ağ (CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN, TBXA2R). (C) Ağ 3: dört genden (HTR1B, HTR2A, HTR2B, HTR6) oluşan tryptamine/serotonin ağı. Ağlar, protein-protein etkileşim ağı oluşturma ve yol zenginleştirme güven değeri ≥ 0,70 kullanılarak, minimum Homo sapiens için oluşturulmuştur. Kenarlar, anotasyon destekli fonksiyonel ilişkiyi temsil etmektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
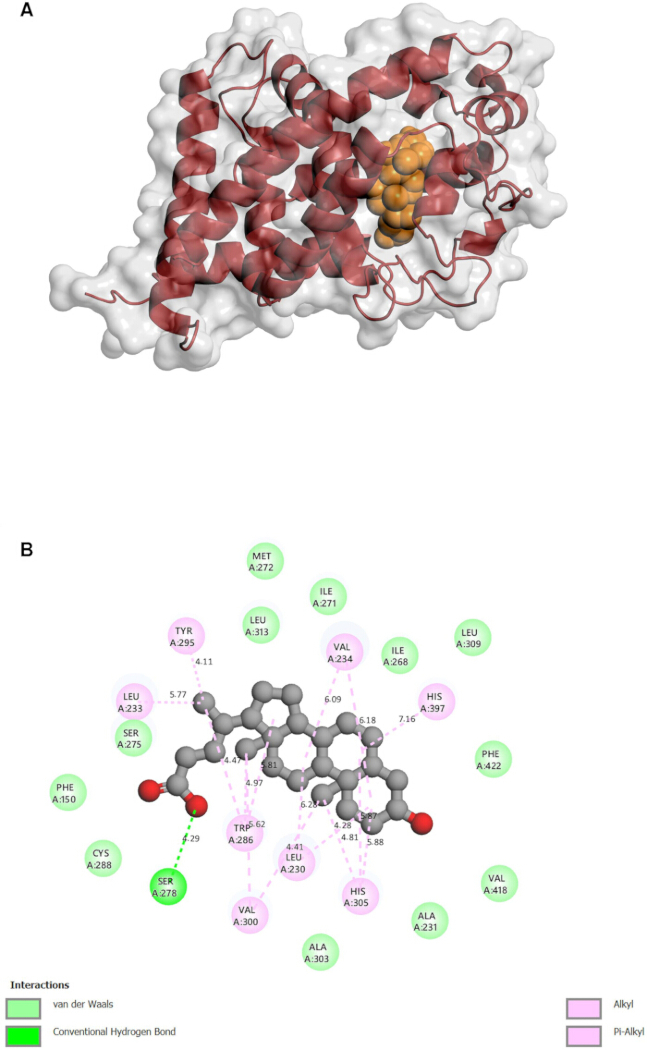
Şekil 5Litokolik asidin VDR (PDB ID: 1DB1) ile kompleks halindeki üç boyutlu ve iki boyutlu yapısal gösterimi. (A) Litokolik asidin küreler şeklinde gösterildiği üç boyutlu yüzey ve karton gösterimi. (B) Ser278 hidrojen bağını ve çevresindeki hidrofobik ve van der Waals temaslarını gösteren iki boyutlu etkileşim haritası. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
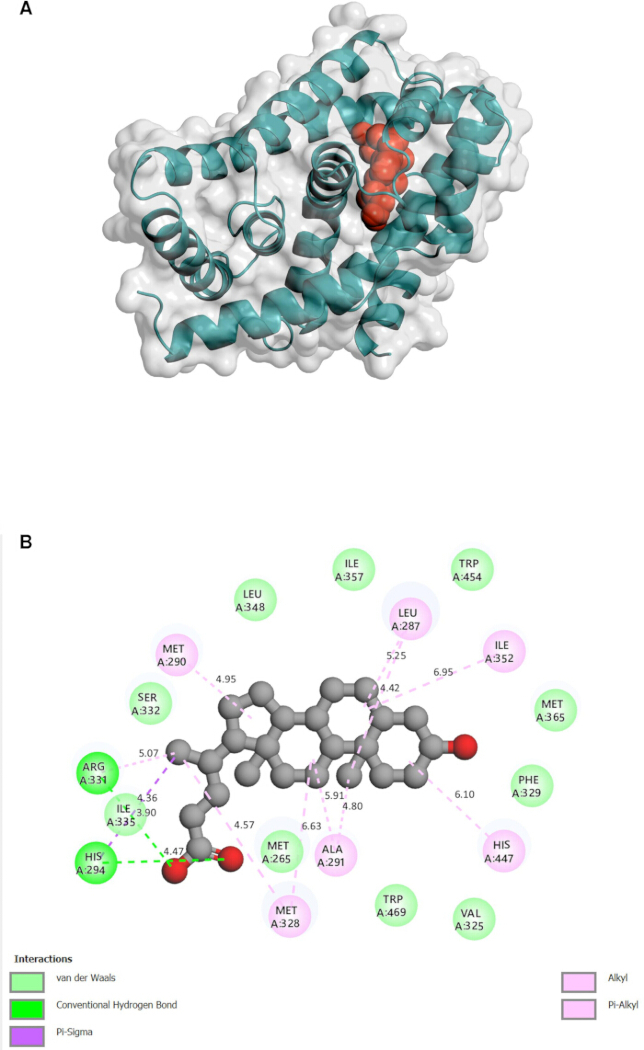
Şekil 6NR1H4/FXR (PDB ID: 3DCT) ile kompleks halindeki litokolik asidin üç boyutlu ve iki boyutlu yapısal temsili. (A) Üç boyutlu yüzey ve çizgi (cartoon) gösterimi. (BHis294 ve Ile35 ile hidrojen bağlarını, bir π-Sigma etkileşimini ve çevredeki temasları gösteren iki boyutlu etkileşim haritası. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
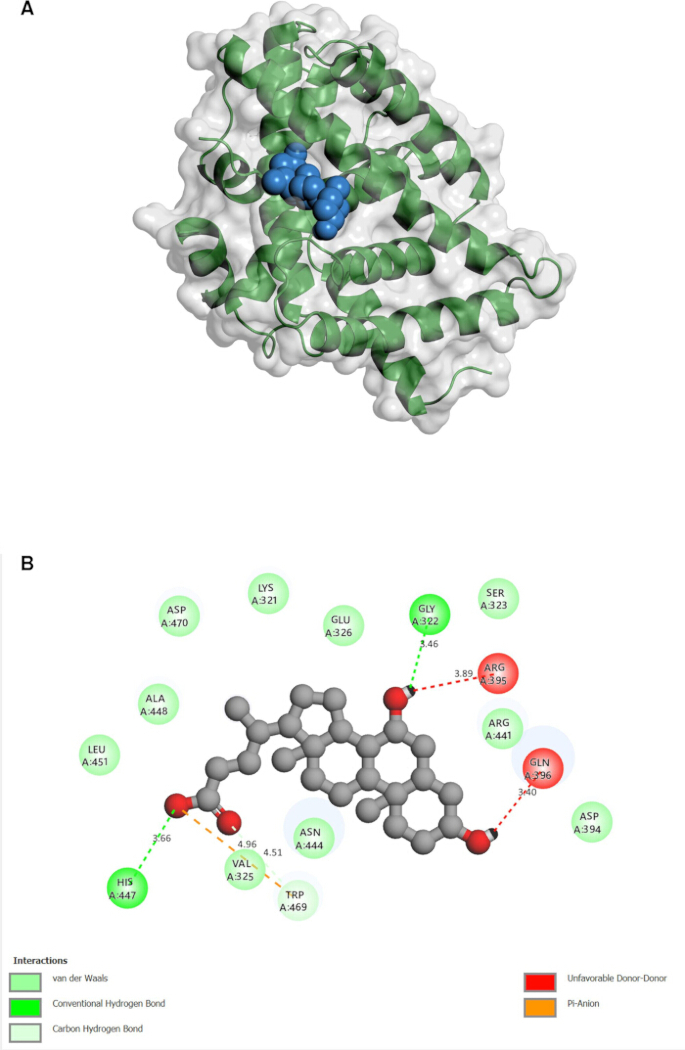
Şekil 7Ursodeoksikolik asidin NR1H4/FXR ile kompleks halindeki üç boyutlu ve iki boyutlu yapısal temsili (PDB ID: 3DCT). (A) Üç boyutlu yüzey ve karton temsili. (BHis47 ve Gly32 ile hidrojen bağlarını, Val325 ile π-anyon etkileşimini, Trp469 ile karbon-hidrojen bağını ve Arg395 ile Gln396 ile elverişsiz donör-donör temaslarını gösteren iki boyutlu etkileşim haritası. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
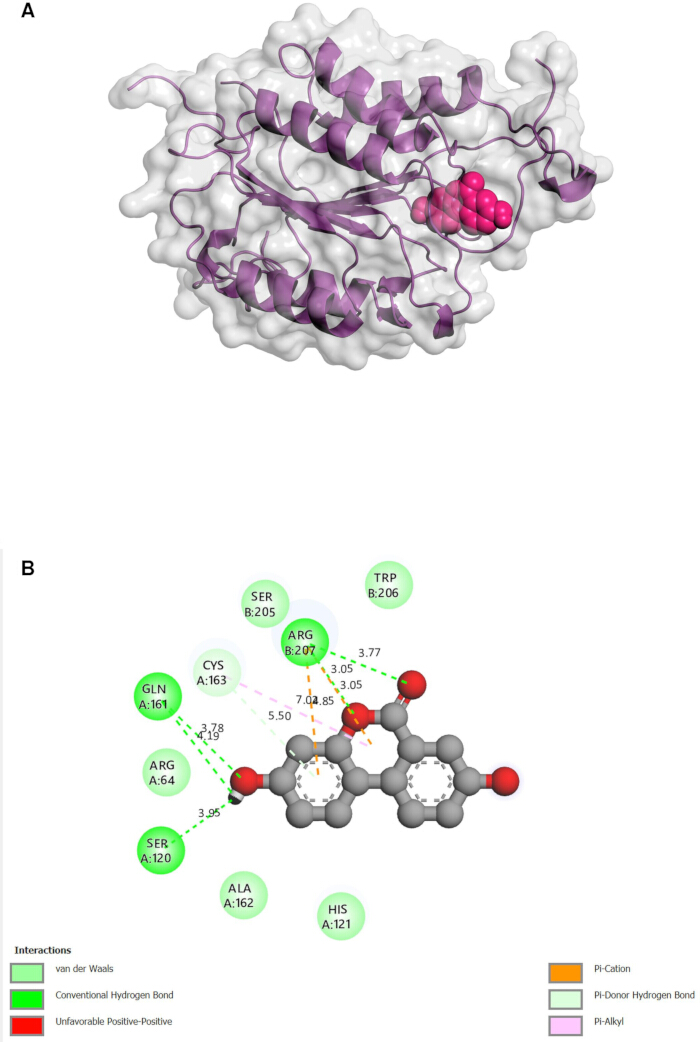
Şekil 8urolithin A'nın CASP3 (PDB ID: 2DKO) ile kompleks halindeki üç boyutlu ve iki boyutlu yapısal gösterimi. (A) Üç boyutlu yüzey ve kartun gösterimi. (B) Gln161, Ser120 ve Arg207 ile hidrojen bağlarını, Arg207 ile π-Katiyon etkileşimlerini, Cys163 ile bir π-Donör hidrojen bağını ve çevreleyen temasları gösteren iki boyutlu etkileşim haritası. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
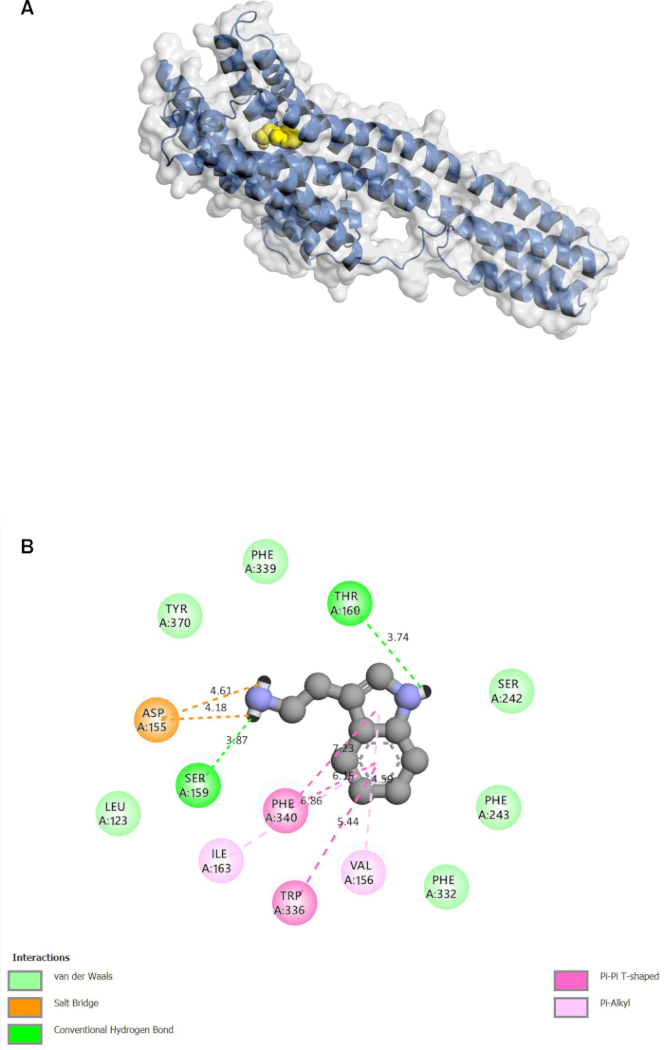
Şekil 9Triptaminin HTR2A ile kompleks halindeki üç boyutlu ve iki boyutlu yapısal temsili (PDB ID: 6A93). (A) Üç boyutlu bir moleküler görselleştirme programında oluşturulmuş üç boyutlu yüzey ve karton temsili. (B) Moleküler görselleştirme ve iki boyutlu etkileşim diyagramı aracıyla oluşturulan, Asp155 tuz köprüsünü ve ek bağlanma bölgesi etkileşimlerini gösteren iki boyutlu etkileşim haritası. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
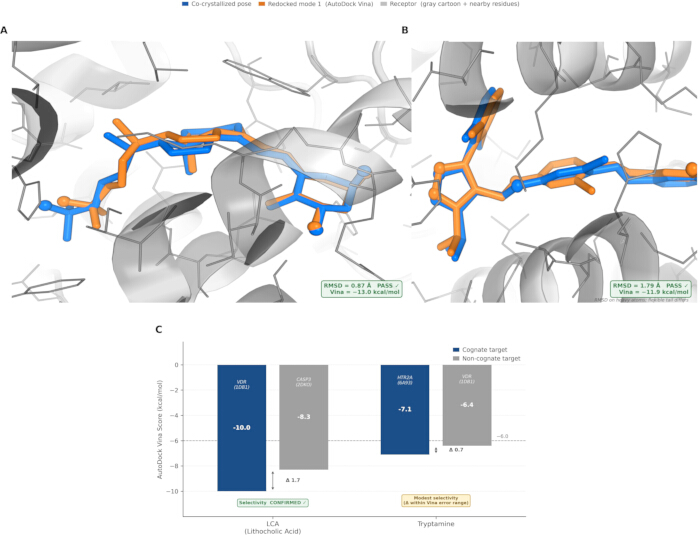
Şekil 10Kenetlenme protokolü validasyonu. (A,B) Ko-kristalize ligandların VDR/1DB1 (RMSD 0,87 Å) ve FXR/3DCT (RMSD 1,79 Å) yapılarına yeniden kenetlenmesi (redocking); kristalografik ve yeniden kenetlenmiş pozlar üst üste getirilmiştir ve her ikisi de 2,0 Å kabul eşiğinin altındadır. (C) Cross-docking seçiciliği: litokolik asit ve triptamin için kognat ile non-kognat Vina skorları. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
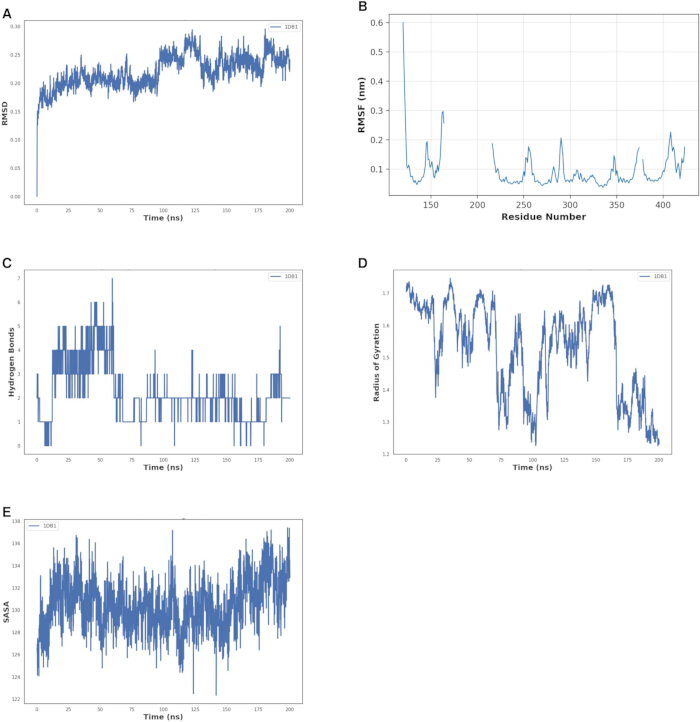
Şekil 1LCA-VDR/1DB1 kompleksinin 20 ns boyunca moleküler dinamik yörünge analizi. (A) RMSD profili. (B) RMSF profili. (C) Hidrojen bağı sayısı. (D) Jirasyon yarıçapı profili. (E) SASA profili. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
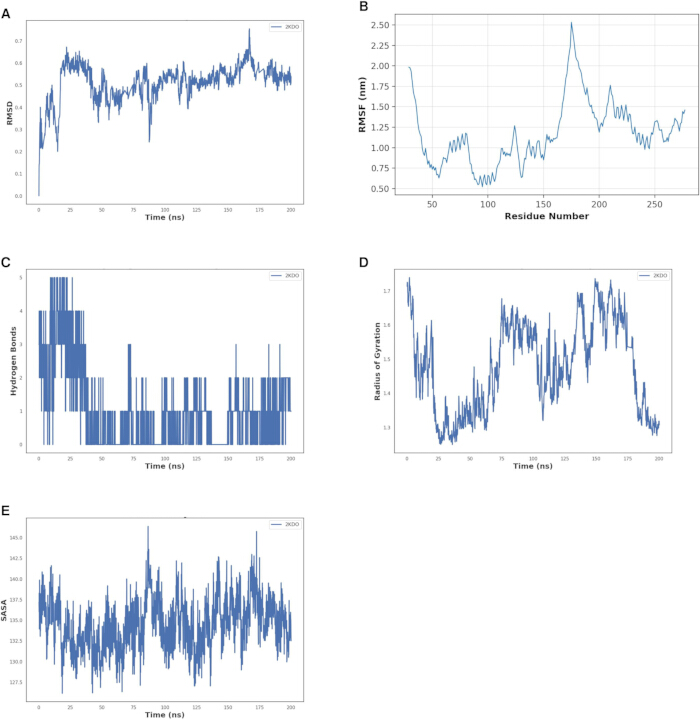
Şekil 12urolithin A-CASP3/2DKO kompleksinin 20 ns boyunca moleküler dinamik yörünge analizi. (A) 165 ns civarında geniş konformasyonel dalgalanmaları ve geçici bir yüksek sapma olayını gösteren RMSD profili. (B) 175. kalıntının yakınında belirgin kalıntı düzeyinde esneklik gösteren RMSF profili. (C) Hidrojen bağı sayısı. (D) Jirelasyon yarıçapı profili. (E) SASA profili. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
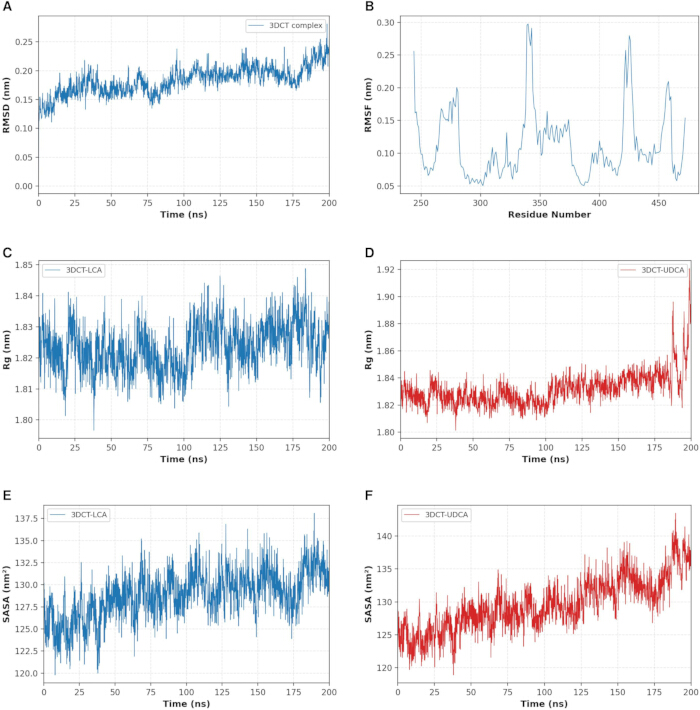
Şekil 13NR1H4/FXR (3DCT) safra asidi sistemlerinin 200 ns boyunca moleküler dinamik yörünge analizi. (A) 3DCT kompleksi için ana zincir RMSD profili. (B) Omurga RMSF profili. (C) 3DCT-LCA için jirasyon yarıçapı profili. (D) 3DCT-UDCA için jirasyon yarıçapı profili. (E) 3DCT-LCA için SASA profili. (F) 3DCT-UDCA için SASA profili. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
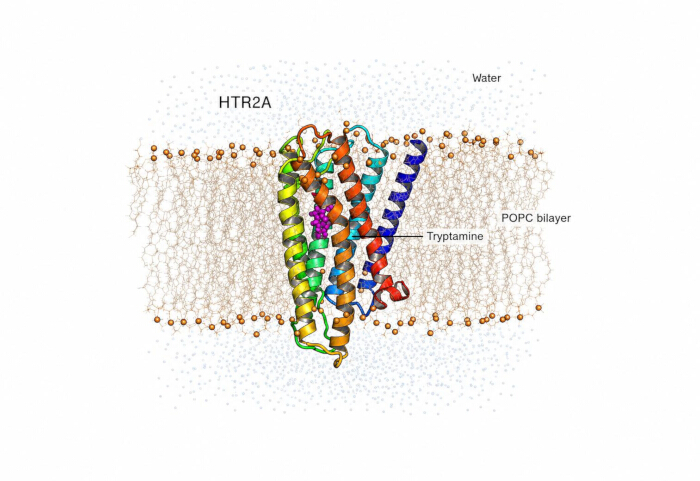
Şekil 14Açık bir POPC lipid çift katmanına gömülmüş tryptamine-HTR2A kompleksi. Reseptör, çift katmanı kaplayan bir çizim (cartoon) şeklinde; POPC lipidleri, fosfat baş grupları vurgulanmış çizgiler şeklinde ve tryptamine ortosterik cep içerisinde gösterilmiştir. Su, membranın üstünde ve altında gösterilmektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
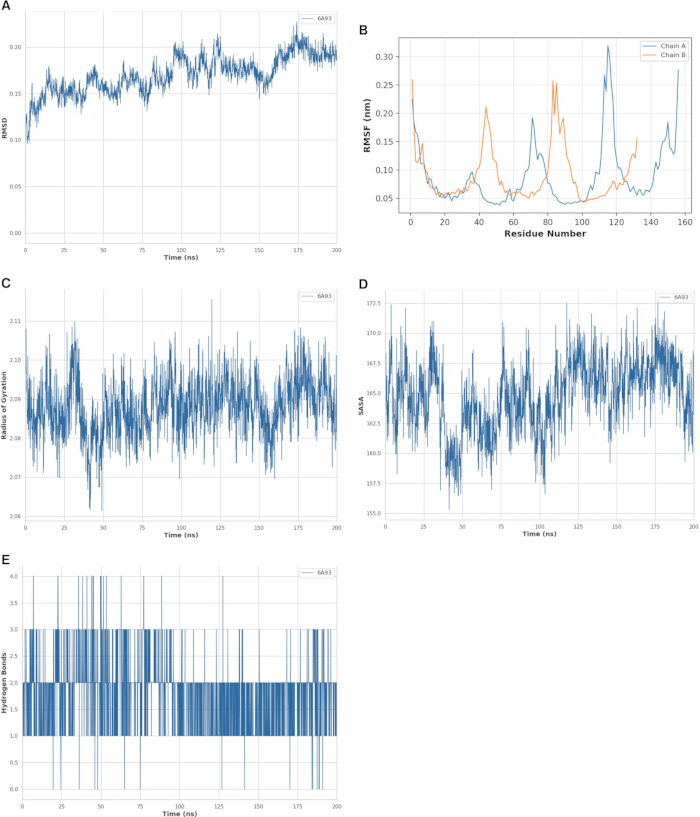
Şekil 15Açık POPC lipid çift katmanında, tryptamine-HTR2A/6A93 kompleksinin 20 ns boyunca moleküler dinamik yörünge analizi. (A) Omurga RMSD profili. (B) Kalıntı başına RMSF profili. (C) Jirasyon yarıçapı profili. (Sizden herhangi bir kaynak metinye ulaşmadım. Lütfen çevirmemi istediğiniz İngilizce metni paylaşın; böylece araştırmacılar, klinisyenler, eğitimciler ve üniversite öğrencileri için uygun akademik tonda, bilimsel doğruluğu korunmuş ve doğal bir Türkçe ile çevirisini gerçekleştirebilirim.) SASA profili. (E) Protein-ligand hidrojen bağı sayısı. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
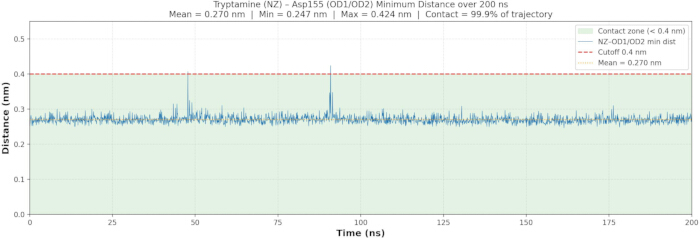
Şekil 1620 ns'lik membran trajektörü boyunca triptamin–Asp15 (D3.32) iyonik etkileşiminin sürekliliği. Triptamin amonyum azotu ile Asp15 karboksilat oksijen atomları arasındaki minimum mesafe zamana karşı grafiğe aktarılmıştır; kesikli çizgi 0,4 nm'lik tuz köprüsü temas eşiğini belirtmektedir. Temas, simülasyonun %9,9'u boyunca korunmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Gen Sembolü | Kaynak Metabolit(ler) | Fonksiyonel Kategori | log2FC | FDR (düzeltilmiş P-değeri) | Önem Seviyesi |
| GCG | Propiyonat | Peptid hormon ilişkili protein | −1.342 | 1,97e−7 | Yanlış Kezif Oranı (FDR) <0.001 & |logFC > 1 |
| HDAC3 | Bütirat | Enzim | −1.234 | 2,4e−6 | Yanıltıcı Keşif Oranı <0.001 & |logFC| > 1 |
| CASP3 | Urolitin A | Enzim | −1.198 | 6,6e−7 | Yanlış Kezif Oranı <0.001 & |logFC| > 1 |
| GPR68 | Propionat | Membran reseptörü | −1.137 | 4,35e−6 | Yalancı Keşif Oranı <0.001 & |logFC| > 1 |
| GNAQ | Propiyonat | Hücre içi sinyal proteinleri | −1.122 | 1,05e−6 | Yalancı Keşif Oranı (FDR) <0.001 & |logFC| > 1 |
| GPHN | Propiyonat | Diğer hücre içi protein | −1.109 | 1,13e−6 | Yalancı Keşif Oranı (FDR) <0.001 & |logFC| > 1 |
| TBXA2R | Propiyonat | Membran reseptörü | −1.104 | 4,04e−7 | Yalancı Keşif Oranı <0.001 & |logFC| > 1 |
| HTR6 | Triptamin | Membran reseptörü | −0.967 | 2,17e−5 | Yanlış Keşif Oranı (FDR) <0.001 |
| VDR | Litokolik asit | Nükleer reseptör | −0.942 | 5,73e−7 | Yanlış Kezif Oranı (FDR) <0.001 |
| HTR2A | Triptamin | Membran reseptörü | −0.937 | 4,9e−6 | Yanıltıcı Kezif Oranı (FDR) <0.001 |
| FFAR2 | Propionat | Membran reseptörü | −0.889 | 1,4e−4 | Yanlış Kezif Oranı (FDR) <0.001 |
| NR1H4 | Litokolik asit / Ursodeoksikolik asit | Nükleer reseptör | −0.861 | 3,68e−6 | Yanıltıcı Kez Tespit Oranı (FDR) <0.001 |
| HTR2B | Triptamin | Membran reseptörü | −0.702 | 1,29e−4 | Yalancı Keşif Oranı <0.001 |
| MLN | Propiyonat | Peptit hormonla ilişkili protein | −0.605 | 7,39e−5 | Yanıltıcı Kez Oranı (FDR) <0.001 |
| KYAT1 | İndol-3-laktik asit / İndol-3-propiyonik asit | Enzim | −0.530 | 3,61e−4 | Yalancı Keşif Oranı (FDR) <0.001 |
| Kalsiyum Algılayan Reseptör (CASR) | Propiyonat | Membran reseptörü | −0.483 | 4,05e−4 | Yanılsama Oranı (FDR) <0.001 |
| HTR1B | Triptamin | Membran reseptörü | −0.455 | 3,18e−2 | FDR (Yanlış Keşif Oranı) <0.05 |
Tablo 1: IBS-C rektal mukoza veri setindeki diferansiyel eksprese genlerle örtüşen, öngörülen metabolit ilişkili hedef genler. Listelenen tüm örtüşen genler downregüle olmuştur. Tablo 1, ayrı bir hesap tablosu olarak sunulmuştur ve her bir hedef için; köken metabolit(ler)i, fonksiyonel kategori, hedef öngörü kaynağı (bir kimyasal-protein etkileşim hedef öngörüsü, bir moleküler kenetlenme programı veya her ikisi), kimyasal-protein etkileşim hedef öngörüsü birleşik etkileşim skoru ve mevcut olduğunda moleküler kenetlenme programı olasılığı, öngörü aşaması, log2 kat değişimi ve ekspresyon-anlamlılık aşamasıyla birlikte FDR değerlerini listelemektedir. Kaynak: Gen ekspresyon değerleri, gen bazında birleştirilmiş GSE36701 diferansiyel-ekspresyon tablosundan (gen başına en düşük FDR probları) elde edilmiştir. Hedef öngörü kaynağı ve güven değerleri, kimyasal-protein etkileşim hedef öngörüsü birleşik etkileşim skorunun ≥ 0,700 ve moleküler kenetlenme programı olasılığının ≥ 0,70 olduğu eşik değerleri kullanılarak, bir kimyasal-protein etkileşim hedef öngörüsü ve bir moleküler kenetlenme programının çıktılarından derlenmiştir. Kimyasal-protein etkileşim hedef öngörüsü skorları 0–1 ölçeğindeki birleşik skorlardır; STP, bir moleküler kenetlenme programı olasılığını belirtir. Aşama 1 = kesin kimyasal-protein etkileşim hedef öngörüsü desteği; Aşama 1+ = bir moleküler kenetlenme programı tarafından çapraz desteklenen kesin kimyasal-protein etkileşim hedef öngörüsü desteği.
| Kompleks | Protein (PDB ID) | Ligand | Vina Skoru (kcal/mol) | Kavite Boyutu (A^3) | Izgara Merkezi X,Y,Z (A) | Arama Kutusu (A) |
| LCA-VDR | VDR (1DB1) | Litokolik asit | −10.0 | 2055 | 10, 19, 33 | 25 x 25 x 25 |
| LCA-NR1H4/FXR | NR1H4/FXR (3DCT) | Litokolik asit | −9.9 | 3395 | 137, 31, 78 | 25 x 25 x 25 |
| UDCA-NR1H4/FXR | NR1H4/FXR (3DCT) | Ursodeoksikolik asit | −9.4 | 3395 | 137, 31, 78 | 25 x 25 x 25 |
| Urolitin A-CASP3 | CASP3 (2DKO) | Urolithin A | −7.1 | 233 | 37, 34, 32 | 25 x 25 x 25 |
| Triptamin-HTR2A | HTR2A (6A93) | Triptamin | −7.1 | 3238 | 12, −1, 61 | 25 x 25 x 25 |
Tablo 2: Moleküler kenetleme sonuçları: öncelikli beş protein-ligand kompleksi için hedef proteinlere metabolit ligandların moleküler kenetlemesinde en yüksek sıralamaya sahip skorlar ve boşluk parametreleri. Boşluk boyutu Å3 cinsinden bildirilmiştir. Kaynak: Docking_Validation/Results/Docking_Validation_Results.xlsx, 'Original_Docking_Scores' sayfası. Hedef proteinlere metabolit ligandların moleküler kenetlemesi; tüm kompleksler için exhaustiveness = 8, seed = 42 (sabit), num_modes = 9; en yüksek sıralamaya sahip (mod 1) poz bildirilmiştir.
| Etkileşim Türü | Kalıntı(lar) | Mesafe (A) | Notlar |
| Konvansiyonel hidrojen bağı | Ser278 | 4.29 | LCA karboksilat oksijeni |
| Hidrofobik / Pi-Alkil temas | Leu230, Val234, Trp286, Val30, His305, Tyr295, Leu23, His397 | - | |
| Van der Waals teması | Met272, Leu313, Ile271, Ile268, Leu309, Phe42, Val418, Ala231, Ala303, Cys28, Ser275, Phe150 | - |
Tablo 3: VDR (PDB ID: 1DB1) ile litokolik asit docking işlemi için oluşturulan bağlanma modları.Kaynak: moleküler görselleştirme ve iki boyutlu etkileşim diyagramı aracı 2D ligand-kalıntı etkileşim diyagramları, makalenin Sonuçlar (Moleküler docking) bölümünde bildirildiği gibidir. '-' işareti, söz konusu temas için ayrı bir mesafe değerinin bildirilmediğini gösterir.
| Etkileşim Türü | Kalıntı(lar) | Mesafe (A) | Notlar |
| Hidrojen bağı | His294 | - | |
| Hidrojen bağı | Ile35 | - | |
| Pi-Sigma etkileşimi | His294 | - | |
| Alkil / Pi-Alkil (hidrofobik) | Met290, Met328, Ala291, Leu287, Ile352, His47 | - | |
| Van der Waals teması | Ek cep kalıntıları (kaynakta tek belirtilmemiştir) | - | Steroid iskelet uyumunu destekler |
Tablo 4: NR1H4/FXR (PDB ID: 3DCT) ile litokolik asit docking işlemi için oluşturulan bağlanma modları.
Kaynak: moleküler görselleştirme ve iki boyutlu etkileşim diyagramı aracı 2D ligand-kalıntı etkileşim diyagramları, makale Sonuçlar (Moleküler kenetleme) bölümünde bildirildiği gibidir. '-' işareti, o temas için ayrı bir mesafe değerinin bildirilmediğini gösterir.
| Etkileşim Türü | Kalıntı(lar) | Mesafe (A) | Notlar |
| Konvansiyonel hidrojen bağı | His47 | 3.66 | |
| Hidrojen bağı | Gly32 | 3.46 | |
| Pi-Anyon etkileşimi | Val325 | 4.96 | |
| Karbon-hidrojen bağı | Trp469 | 4.51 | |
| Elverişsiz donör-donör teması | Arg395 | 3.89 | |
| Elverişsiz donör-donör teması | Gln396 | 3.40 |
Tablo 5: Ursodeoksikolik asidin NR1H4/FXR (PDB ID: 3DCT) ile kenetlenmesi için oluşturulan bağlanma modları.Kaynak: moleküler görselleştirme ve iki boyutlu etkileşim diyagramı aracı 2D ligand-kalıntı etkileşim diyagramları, makalenin Sonuçlar (Moleküler kenetlenme) bölümünde bildirildiği gibidir. '-' işareti, söz konusu temas için tekil bir mesafe değerinin bildirilmediğini gösterir.
| Etkileşim Türü | Kalıntı(lar) | Mesafe (A) | Notlar |
| Konvansiyonel hidrojen bağı | Gln161 | 3.78 | |
| Konvansiyonel hidrojen bağı | Gln161 | 4.19 | ikinci temas |
| Konvansiyonel hidrojen bağı | Ser120 | 3.95 | |
| Konvansiyonel hidrojen bağı | Arg207 | 3.05 | |
| Konvansiyonel hidrojen bağı | Arg207 | 3.7 | ikinci temas |
| Pi-Katyon etkileşimi | Arg207 | - | |
| Pi-Donör hidrojen bağı | Cys163 | - | |
| Pi-Alkil / van der Waals teması | Arg64, Ala162, His121, Ser205, Trp206 | - |
Tablo 6: urolithin A'nın CASP3 (PDB ID: 2DKO) ile kenetlenmesi için oluşturulan bağlanma modları.Kaynak: moleküler görselleştirme ve iki boyutlu etkileşim diyagramı aracı 2D ligand-kalıntı etkileşim diyagramları, makalenin Sonuçlar (Moleküler kenetlenme) kısmında bildirildiği gibidir. '-' işareti, söz konusu temas için tek bir mesafe değerinin bildirilmediğini gösterir.
| Etkileşim Türü | Kalıntı(lar) | Mesafe (A) | Notlar |
| Elektrostatik tuz köprüsü | Asp15 (D3.32) | - | triptaminin protonlanmış amini |
| Hidrojen bağı | Thr160 | - | |
| Hidrojen bağı | Ser159 | - | |
| Aromatik temas | Phe340, Trp36 | - | |
| Pi-Alkil etkileşimi | Val156, Ile163 | - | |
| Van der Waals teması | Tyr370, Phe39, Ser242, Phe243, Phe32, Leu123 | - |
Tablo 7: HTR2A (PDB ID: 6A93) ile tryptamine kenetlenmesi için oluşturulan bağlanma modları.Kaynak: moleküler görselleştirme ve iki boyutlu etkileşim şeması aracı 2D ligand-kalıntı etkileşim şemaları, makalenin Sonuçlar (Moleküler kenetlenme) bölümünde bildirildiği gibidir. '-' işareti, o temas için ayrı bir mesafe değerinin bildirilmediğini gösterir.
| (A) Yeniden kenetlenme doğrulaması (pozitif kontroller) | ||||||
| PDB Kimliği | Protein | Ko-kristal Ligand | Vina Skoru (kcal/mol) | RMSD (Å) | Eşik (A) | Sonuç |
| 1DB1 | VDR | VDX (vitamin D analoğu) | −13.0 | 0.87 | 2.0 | GEÇİŞ |
| 3B-BT | FXR | WAY-362450 (064) | −11.9 | 1.79 | 2.0 | GEÇİŞ |
| (B) Çapraz yükleme doğrulaması (negatif kontroller) | ||||||
| Ligand | Kognat Hedef (PDB) | Kognat Skor (kcal/mol) | Kognat Olmayan Hedef (PDB) | Kognat Olmayan Skor (kcal/mol) | Delta (kcal/mol) | Seçicilik |
| Litokolik asit | VDR (1DB1) | −10.0 | CASP3 (2DKO) | −8.3 | 1.7 | Onaylandı |
| Triptamin | HTR2A (6A93) | −7.1 | VDR (1DB1) | −6.4 | 0.7 | Kısıtlı (Vina belirsizliği dahilinde +/−0,5–1,0) |
Tablo 8: Kenetlenme protokolü doğrulama sonuçları: yeniden kenetlenme RMSD değerleri (pozitif kontroller) ve çapraz kenetlenme skorları (negatif kontroller). Kaynak: Docking_Validation/Results/Docking_Validation_Results.xlsx ve Docking_Validation/Logs/*.log (metabolit ligandların hedef proteinlere moleküler kenetlenmesi, exhaustiveness = 8, seed = 42, 25 Å × 25 Å × 25 Å kutu). RMSD, ağır atom, atom adı eşleşmesiyle hesaplanmıştır (süperpozisyon yapılmamıştır).
| Kompleks | RMSD (nm), ortalama + / – SD (aralık) | Rg (nm), ortalama + / – SD (aralık) | SASA (nm^2), ortalama + / – SD (aralık) | H-bağları, ortalama + / – SD (aralık) | RMSF (nm), ortalama (maks) |
| LCA-VDR/1DB1 | 0.230 + / – 0.025 (0.167–0.296) | 1.89 + / − 0.09 (1.863–1.919) | 130.4 + / − 2.3 (12.3–137.4) | 1.9 + / − 0.9 (0–7) | 0.093 (maks 0.600, kalıntı 120'de) |
| LCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.824 + / − 0.08 (1.804–1.849) | 129.7 + / − 2.3 (121.9–138.1) | 3.8 + / − 0.7 (1–6) | 0.13 (maks 0.298) |
| UDCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.834 + / − 0.013 (1.809–1.921) | 131.0 + / −3.4 (121.6–143.5) | 1.1 + / − 1.1 (0–5) | 0.13 (maks 0.298) |
| Urolithin A-CASP3/2DKO | 0.521 + / – 0.058 (0.24–0.75) | 1.892 + / − 0.024 (1.839–1.984) | 134.9 + / − 3.0 (126.4–146.4) | 0.6 + / − 0.7 (0–3) | 1.172 (maks 2.532, kalıntı 175'te) |
| Tryptamine-HTR2A/6A93 (membran) | 0.17 + / –0.017 (0.131–0.27) | 2.089 + / − 0.007 (2.070–2.16) | 165.1 + / − 2.7 (156.–172.7) | 1.7 + / − 0.7 (0–4) | 0.090 (maks 0.319) |
Tablo 9: Membran gömülü tryptamine-HTR2A sistemi dahil olmak üzere, önceliklendirilmiş beş protein-ligand kompleksinin 20 ns'lik moleküler dinamik simülasyon davranışlarının özeti.Kaynak: protokol adım 8.8 uyarınca, her bir 200 ns'lik üretim yürütmesinin son 150 ns'si (50–20 ns) üzerinden hesaplanan moleküler dinamik yörünge analiz araçları (.xvg) dosyaları — gmx rms, gmx gyrate, gmx sasa, gmx hbond, gmx rmsf. RMSD/Rg omurga uyumlu; SASA prob yarıçapı 0.14 nm; H-bağı donör-akseptör kesme değeri 0.35 nm / 30 °. LCA-3DCT ve UDCA-3DCT, liganda özgü Rg/SASA/H-bağları ile birlikte tek bir protein omurga yörüngesini (RMSD, RMSF) paylaşmaktadır.
| Tryptamine-HTR2A/6A93 (membran) — kalıntı bazlı kantitatif ayrıştırma | ||
| Kalıntı | Toplam ddG katkısı (kcal/mol), ortalama + / − SD | Yön |
| Asp15 (D3.32) | −89.94 + / − 6.81 | Stabilize edici (dominant) |
| Tryptamine (ligand) | −13.01 + / − 6.2 | Stabilize edici |
| Tyr171 | 13.62 + / − 4.54 | Destabilize edici |
| Val167 | 23.32 + / − 3.96 | Destabilize edici |
| Val156 | 20.03 + / − 3.81 | Destabilize edici |
| Thr160 | 4.86 + / − 3.64 | Destabilize edici |
| Ser159 | 24.16 + / − 3.48 | Destabilize edici |
| Ser86 | 24.48 + / − 3.65 | Destabilize edici |
| Phe87 | 35.18 + / − 4.04 | Destabilize edici |
| Phe13 | 32.80 + / −3.70 | Destabilize edici |
| Phe140 | 30.63 + / − 3.84 | Destabilize edici |
| Phe141 | 35.25 + / − 3.5 | Destabilize edici |
| Ile163 | 27.64 + / − 3.71 | Destabilize edici |
| Trp137 | 53.7 + / − 4.32 | Destabilize edici (en büyük elverişsiz) |
| Diğer dört kompleks — kalıntı bazlı ayrıştırmada tanımlanan kalıntılar (kalitatif) | ||
| Kompleks | Kalıntı | Yön |
| LCA-VDR/1DB1 | Ligand (LCA) | Elverişli |
| LCA-VDR/1DB1 | Gln317 | Elverişli |
| LCA-VDR/1DB1 | Trp286 | Elverişsiz |
| LCA-NR1H4/FXR/3DCT | Arg331 | Elverişli (dominant) |
| UDCA-NR1H4/FXR/3DCT | Glu326 | Karma/dağıtılmış ağ |
| UDCA-NR1H4/FXR/3DCT | Asp394 | Karma/dağıtılmış ağ |
| UDCA-NR1H4/FXR/3DCT | Arg395 | Karma/dağıtılmış ağ |
| UDCA-NR1H4/FXR/3DCT | Arg41 | Karma/dağıtılmış ağ |
| UDCA-NR1H4/FXR/3DCT | Asp470 | Karma/dağıtılmış ağ |
| Urolithin A-CASP3/2DKO | Arg64 | Güçlü elverişli (polar/elektrostatik) |
| Urolithin A-CASP3/2DKO | Arg207 | Güçlü elverişli (polar/elektrostatik) |
Tablo 10: Kalıntı başına MM-PBSA ayrıştırması KISA ÖZET: Membrana gömülü tryptamine-HTR2A sistemi dahil olmak üzere, önceliklendirilmiş beş protein-ligand kompleksinin her biri için stabilize edici ve destabilize edici kalıntılar (≥ 0.5 kcal mol⁻1 mutlak katkı).Kaynak: Membrane Simulation/03_MMPBSA/results/FINAL_DECOMP_MMPBSA.dat (moleküler mekanik/kontinuum-solvent bağlanma enerjisi hesaplama aracı Generalized Born (GB) kalıntı başına ayrıştırma, 'Complex: Total Energy Decomposition'). Kalıntı numaraları, CHARMM-GUI ile oluşturulan sistemin dahili numaralandırmasından (offset +68), bu makalede kullanılan orijinal 6A93 PDB numaralandırmasına dönüştürülmüştür.
Kaynak: Previous_MD Simulation data/1DB1,2KD0, LCA & UDCA_3DCT}/mmpbsa_*/Decomposition_NORMAL_GB_Complex_TDC*.svg ve makale Sonuçları (MM-PBSA bağlanma serbest enerjisi ve kalıntı başına ayrışma). Bu dört kompleksin proje dizininde sayısal kalıntı başına .dat/.csv çıktısı bulunmamaktadır (yalnızca makine tarafından ayıklanamayan vektör yol metnine sahip işlenmiş SVG grafikleri mevcuttur); makale metninde belirtildiği üzere yalnızca kalıntı kimliği ve uygun/uygun olmayan yön rapor edilmiştir. Bu dört kompleks için kesin kcal/mol katkıları kaynak deposunda mevcut değildir.
Tartışma
Bu keşif amaçlı hesaplamalı çalışma, burada halka açık bir IBS-C rektal mukozal transkriptomik veri setine uygulanan, mikrobiyal metabolitlerle ilişkili konak genlerini ve protein-ligand komplekslerini önceliklendirmeye yönelik entegre ve tekrarlanabilir bir iş akışını ortaya koymaktadır. Bu iş akışı kullanılarak, tahmin edilen mikrobiyal metabolitlerle ilişkili genlerin bir alt kümesinin, veri setinde tutarlı bir şekilde aşağı regüle edilmiş genlerle örtüştüğü ve mikrobiyota-konak iletişimiyle giderek daha fazla ilişkilendirilen GPCR, serotonerjik, kalsiyum sinyalizasyonu, nöroaktif ligand-reseptör ve nükleer reseptörle ilişkili yolaklarda kümelendiği görülmüştür48,49. Bu bulgular kesinlikle hipotez üretici olarak yorumlanmalıdır: analiz; mikrobiyal metabolit konsantrasyonlarını, reseptör protein bolluğunu, ligand bağlanmasını, reseptör aktivasyonunu, aşağı akış sinyalizasyonunu, motiliteyi, sekresyonu, ağrı yanıtlarını veya klinik sonuçları ölçmemektedir. Desteklenebilir en güçlü sonuç, tanımlanan genlerin ve yolakların onaylanmış hastalık mekanizmaları değil, deneysel doğrulama için adaylar olduğudur.
Tekil metabolit-reseptör çiftlerini izole olarak inceleyen önceki çalışmalara kıyasla bu protokolün kritik önemi; hedef tahmini, halka açık transkriptomik veriler, ağ analizi, doğrulama kontrolleriyle birlikte docking, moleküler dinamik ve MM-PBSA'nın tek bir ardışık önceliklendirme hattına entegre edilmesinde yatmaktadır. Her aşama, bir önceki aşamadan elde edilen aday setini daraltır ve bağlamsallaştırır; nihai aday listesini deneysel olarak yönetilebilir kılan da bu ardışık filtrelemedir. Burada tanımlanan GNAQ merkezli GPCR modülü ve serotonin reseptörü ilişkili modül; Gq sinyalizasyonunun fosfolipaz C aktivasyonu, inositol 1,4,5-trisfosfat üretimi, kalsiyum mobilizasyonu, salgı ve enteroendokrin fonksiyonundaki rolü ile kısa zincirli yağ asitlerinin ve triptofan türevli sinyalizasyonun mukozal homeostazdaki, serotonerjik sinyalizasyonun ise gastrointestinal motilite, salgı, visseral hassasiyet ve bağırsak-beyin iletişimindeki yerleşik rolleri göz önüne alındığında biyolojik olarak makuldür10,18,50,51.
Bu çalışmanın temel metodolojik özelliği, membrana gömülü reseptör HTR2A'nın ele alınış biçimidir. Çözünür faz simülasyonu, bir G proteini kenetli reseptörün konformasyonel davranışını yöneten lipid ortamını yeniden oluşturamadığından, tryptamine-HTR2A kompleksi açık bir POPC çift katmanında simüle edilmiştir. Bu membran ortamında reseptör, 200 ns'lik tüm trajektori boyunca yapısal olarak stabil kalmış ve tryptamine amonyum-Asp155 (D3.32) tuz köprüsü simülasyonun neredeyse tamamı boyunca korunmuştur. Kenetleme pozisyonu, trajektori boyunca süregelen temas mesafesi ve kalıntı başına baskın MM-PBSA katkısı şeklindeki üç bağımsız kanıt hattının aynı korunumlu D3.32 etkileşiminde birleşmesi, serotonin reseptörlerindeki aminerjik ligandların kanonik bağlanma geometrisini yeniden canlandıran öngörülen tryptamine bağlanma modu için dahili tutarlılık sağlamaktadır.
Bu iş akışını yeniden üretirken dikkate alınması gereken belirli metodolojik hususlar vardır. Kanonik yapıdaki hatalar veya Pan-assay interference compounds ((PAINS) olarak işaretlenmiş bileşikler, hedef tahmini ve docking üzerinden yayılır; bu durum, doğru metabolit seçimini ve kemoinformatik kürasyonu gerektirir. Güven kriterlerini tutarlı bir şekilde uygulayarak gürültü kaynaklı hedef kümelerini minimize edin (kimyasal-protein etkileşimi hedef tahmini: ≥0.700; moleküler docking programı: ≥0.70; Protein-protein etkileşim ağı oluşturma ve yol zenginleştirme: ≥0.700). Tüm metabolit ilişkili genlerin reseptör olarak yanlış tanımlanmasını önlemek için tahmin edilen hedefler fonksiyonel kategoriye göre gruplandırılmalıdır. PDB yapılarının hassas ön işlemesi, ligand enerji minimizasyonu ve bilinen bağlanma kalıntıları çevresine ızgara yerleşimi, docking'in temel yönleridir; burada sunulan redocking ve cross-docking kontrolleri, docking metodolojisinin doğruluğuna dair objektif bir ölçüt sağlar. Moleküler dinamikteki tekrarlanabilirlik zarfı; kuvvet alanı parametrizasyonu, uygun solvatasyon veya membran oluşturma, aşamalı dengeleme ve yeterli üretim örneklemesinin bir kombinasyonu ile tanımlanır.
Tipik adaptasyonlar ve sorun giderme adımları arasında; hedef tahminlemesi herhangi bir sonuç döndürmediğinde eşik değerlerinin gevşetilmesi, birden fazla proba sahip genler için prob düzeyinde yönsel tutarlılığın kontrol edilmesi ve izole protein-protein etkileşim ağı kurgusu ile yol zenginleştirme düğümlerinin biyolojik olarak ilgisiz değil, eşik değerine bağımlı olarak yorumlanması yer alır. Membran reseptörleri için, burada açıklanan HTR2A yönteminde örneklendiği gibi, sulu simülasyon yerine açık lipid çift katman simülasyonu kullanılmalıdır. Kalıntı başına enerji ayrıştırmasının gerekli olduğu durumlarda, hesaplama ayrıştırma yeteneğine sahip bir motorla gerçekleştirilmeli ve raporlanan kalıntı numaralandırması, belirsizliği önlemek için doğal reseptör numaralandırmasıyla uyumlu hale getirilmelidir. Yol zenginleştirme sonuçlarının, yol düzeyinde bir doğrulamadan ziyade, aday listesi için bir organizasyonel bağlam olarak değerlendirilmesinin en uygun olduğu görüşündeyiz. Mekanik olarak, protein düzeyindeki ko-regülasyondan bağımsız olarak, gen listesi birden fazla serotonin reseptör geni içerdiğinde GPCR, serotonerjik veya kalsiyum sinyalleme terimlerinin zenginleşmesi gerçekleşecektir. Membrana gömülü HTR2A sistemi için RMSD, Rg ve RMSF değerleri, lipid çift katman göz önünde bulundurularak yorumlanmalıdır: sonraki trajektoride Rg'deki bir azalma, küresel açılmadan ziyade transmembran demetinin çift katman kaynaklı konformasyonel adaptasyonunu yansıtabilir ve kalıcı ligand-protein hidrojen bağları, genel RMSD stabilitesi ile birlikte değerlendirilmelidir.
Bu çalışmanın kısıtlamaları oldukça fazladır ve yorumlamayı sınırlandırmaktadır. Araştırma, nispeten küçük tek bir kamuya açık veri setine dayanmaktadır ve temel kamuya açık transkriptomik depolarında (web tabanlı diferansiyel gen ekspresyon analiz aracı ve ArrayExpress) yapılan aramalar, analiz sırasında replikasyon kohortu olarak hizmet edebilecek, benzer tasarım ve platforma sahip bağımsız bir IBS-C rektal mukoza transkriptom veri seti tespit edememiştir. Bağımsız transkriptomik replikasyonun eksikliği temel bir kısıtlamadır ve bu makaledeki hiçbir ifade, tek veri setinden elde edilen bulguların dış doğrulama olarak yorumlanmamalıdır. Veri seti, neredeyse evrensel bir diferansiyel ekspresyon (genlerin yaklaşık %94,5'i anlamlıdır ve bunların büyük çoğunluğu downregüle olmuştur) göstermektedir; bu özellik, geleneksel zenginleştirme istatistiklerini bilgisiz kılmakta ve genomik arka plana kıyasla hedef gen downregülasyonunun özgünlüğü hakkında sonuçlar çıkarılmasını engellemektedir; bu nedenle örtüşme, istatistiksel zenginleştirmeden ziyade tanımlayıcı bir yönelimsel model olarak rapor edilmiştir. Bulk mukoza transkriptomiği, gerçek gen regülasyonunu hücre kompozisyonundaki değişikliklerden ayıramaz. mRNA ekspresyonu, protein bolluğunu veya fonksiyonel yanıtı belirlemez. Hedef tahmin veritabanları anotasyon yanlılığından etkilenmekte; docking, MD ve MM-PBSA sonuçları ise kuvvet alanı seçimine, ligand parametrizasyonuna, başlangıç pozisyonuna, simülasyon süresine ve örneklemenin yeterliliğine bağlıdır. CHARMM uyumlu ligand parametrizasyon servisi, CHARMM-GUI ve istatistiksel hesaplama ortamı dahil olmak üzere bazı web sunucusu ve paket bileşenlerinin kesin minor/build tanımlayıcıları
paket yapıları ve moleküler mekanik/sürekli-çözücü bağlanma enerjisi hesaplama aracı alt versiyonları, arşivlenmiş proje kaydından tam olarak geri getirilemedi ve ayrı Malzemeler Tablosunda belirtildiği şekilde raporlanmalıdır. MM-PBSA değerleri göreceli tahminlerdir, açık bir konfigürasyonel entropi terimi içermezler ve deneysel afiniteler olarak yorumlanmamalıdırlar. Çalışma metabolomik verilerden yoksundur ve ligand mevcudiyetinin IBS-C'de değişip değişmediğini veya gözlenen ekspresyon değişikliklerinin nedenler, sonuçlar, kompanse edici yanıtlar veya ilgisiz korelasyonlar olup olmadığını belirleyemez.
Bu yöntemin gelecekteki uygulamaları; bağımsız transkriptomik replikasyon, Kantitatif polimeraz zincir reaksiyonu (qPCR) ve protein düzeyinde doğrulama, tek hücre veya mekansal transkriptomik ile hücre tipi lokalizasyonu, ilgili metabolit sınıflarının metabolomik profillenmesi ve hastadan türetilmiş kolonoidler, mukoza eksplantları veya benzer modellerde fonksiyonel ligand-yanıt analizlerini içermelidir. Diyare baskın IBS, mikst IBS, inflamatuar bağırsak hastalığı ve IBS dışı konstipasyon kohortları ile yapılan karşılaştırmalar1,2 hastalık spesifikliğinin belirlenmesine yardımcı olacaktır. Yapısal bileşen için ise; MD yörüngelerinin tekrarlanması, alternatif başlangıç pozlarıyla hassasiyet analizlerinin yürütülmesi ile topoloji, yörüngeler ve MM-PBSA girdi ve çıktı dosyalarının depolanmasının tam olarak belgelenmesi tekrarlanabilirliği daha da güçlendirecektir. Önceliklendirilen komplekslerin fonksiyonel olarak ilgili olup olmadığını belirlemek için deneysel ligand-yanıt analizleri gereklilik arz etmektedir; mevcut sonuçlar klinik veya terapötik iddiaları desteklememektedir.
Açıklamalar
Yazar, herhangi bir çıkar çatışması olmadığını beyan eder.
Teşekkürler
Bu çalışma için herhangi bir dış finansman alınmamıştır. GSE36701 veri setinin ve STITCH, SwissTargetPrediction, SwissADME, STRING, RCSB Protein Data Bank, Gene Expression Omnibus, CHARMM-GUI ve Orientations of Proteins in Membranes (OPM) kaynaklarının yanı sıra AutoDock Vina, GROMACS, CHARMM36m, CGenFF, gmx_MMPBSA, Open Babel, PyMOL ve Discovery Studio Visualizer yazılımlarının kamuya açık erişilebilirliğiyele minnetle teşekkür edilir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| AutoDock Vina | Scripps Research / açık kaynak | v1.2.7; https://vina.scripps.edu/ | Metabolit ligandların hedef proteinlere moleküler kenetlenmesi. |
| CGenFF/ParamChem | SilcsBio / Maryland Üniversitesi | v4.6; https://cgenff.com/ | Moleküler dinamikler için ligand kuvvet alanı parametreizasyonu. |
| CHARMM36m kuvvet alanı | CHARMM geliştiricileri / açık kaynak | CHARMM36m; https://www.charmm.org/charmm/resources/charmm-force-fields/ | Moleküler dinamik simülasyonları için kullanılan protein kuvvet alanı. |
| CHARMM-GUI Membran Oluşturucu | CHARMM-GUI / Lehigh Üniversitesi | Web sunucusu; kesin sürüm belirlenemedi; https://www.charmm-gui.org/?doc=input/membrane | Açık POPC membran sisteminin kurulumu ve dengeleme ayarları. |
| Discovery Studio Visualizer | BIOVIA (Dassault Systèmes) | 2021; https://discover.3ds.com/discovery-studio-visualizer-download | İki boyutlu ligand-kalıntı etkileşim analizi. |
| GEO2R | NCBI Gene Expression Omnibus | Web aracı; Ocak-Mayıs 2026 arası erişildi; https://www.ncbi.nlm.nih.gov/geo/geo2r/ | GSE36701'in diferansiyel ekspresyon analizi. |
| GeneCards | Weizmann Bilim Enstitüsü | Web veritabanı; Ocak-Mayıs 2026 arası erişildi; https://www.genecards.org/ | Hedef standartlaştırması sırasında gen sembolü ve gen bilgisi doğrulaması. |
| gmx_MMPBSA | Açık kaynak (Valdés-Tresanco ve ark.) | 1.5.x; https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | MM-PBSA bağlanma serbest enerjisi tahmini ve kalıntı bazlı ayrıştırma. |
| GROMACS | GROMACS geliştirme ekibi / açık kaynak | 2024.2; https://www.gromacs.org/ | Moleküler dinamik simülasyon motoru. |
| GSE36701 transkriptomik veri seti | NCBI Gene Expression Omnibus | GSE36701; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE36701 | Genel IBS-C rektal mukoza ekspresyon veri seti. |
| Open Babel | Açık kaynak | 3.2.0; https://openbabel.org/ | Kimyasal dosya formatı dönüştürme, üç boyutlu ligand oluşturma ve ligand hazırlama. |
| OPM veritabanı | Michigan Üniversitesi | Web veritabanı; Ocak-Mayıs 2026 arası erişildi; https://opm.phar.umich.edu/ | HTR2A'yı hizalamak için kullanılan Membranlardaki Proteinlerin Oryantasyonu koordinatları. |
| ParmEd | ParmEd geliştiricileri / açık kaynak | 4.x; https://parmed.github.io/ParmEd/html/index.html | Hidrojen kütle yeniden dağılımı ve moleküler simülasyon topolojisi işleme. |
| PyMOL | Schrödinger / açık kaynak | 2.x; https://www.pymol.org/ | Üç boyutlu yapısal görselleştirme ve reseptör-ligand şekilleri. |
| RCSB Protein Veri Bankası | RCSB PDB | Web veritabanı; Ocak-Mayıs 2026 arası erişildi; https://www.rcsb.org/ | Deneysel protein yapılarının ve PDB koordinatlarının kaynağı. |
| STITCH | STITCH konsorsiyumu (EMBL) | v5.0; https://stitch.embl.de/ | Kimyasal-protein etkileşim hedef tahmini. |
| STRING | STRING Konsorsiyumu / ELIXIR | v12.0; https://version-12-0.string-db.org/ | Protein-protein etkileşim ağı oluşturma ve yol zenginleştirme. |
| SwissADME | SIB İsviçre Biyoenformatik Enstitüsü / Lozan Üniversitesi | Web aracı; Ocak-Mayıs 2026 arası erişildi; https://www.swissadme.ch/ | Kemoinformatik tanımlayıcılar, farmakokinetik tahminler ve PAINS değerlendirmesi. |
| SwissTargetPrediction | SIB İsviçre Biyoenformatik Enstitüsü / Lozan Üniversitesi | Web aracı; Ocak-Mayıs 2026 arası erişildi; https://www.swisstargetprediction.ch/ | İnsan protein hedeflerinin ligand tabanlı tahmini. |
| UniProt ID Eşleştirme | UniProt Konsorsiyumu | Web servisi; Ocak-Mayıs 2026 arası erişildi; https://www.uniprot.org/id-mapping | Protein tanımlayıcılarının standartlaştırılmış HGNC onaylı gen sembolleriyle eşleştirilmesi. |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080; ≥8 GB VRAM; CUDA/sürücü sürümü makalede belirtilmemiştir | Moleküler dinamik simülasyonları için kullanılan CUDA destekli grafik işlem birimi. |
| CUDA uyumlu GPU | NVIDIA Corporation | CUDA araç kiti sürümü makalede belirtilmemiştir; ≥8 GB VRAM | ≥8 GB VRAM'e sahip CUDA destekli GPU; iş istasyonu ayrıca ≥32 GB RAM ve 6 çekirdekli bir CPU gerektirmiştir. |
| Ubuntu Linux | Canonical Ltd. / açık kaynak | 22.04 LTS | 64-bit Linux işletim sistemi. |
| Python 3.9 | Python Yazılım Vakfı | 3.9 | İş akışı betikleme ve analizleri için kullanılan genel amaçlı programlama ortamı. |
| Gen Ekspresyon Omnibusu (GEO) | NCBI / ABD Ulusal Tıp Kütüphanesi | Genel web deposu; makalede yazılım sürümü belirtilmemiştir | Genel fonksiyonel genomik veri deposu. |
| AutoDockTools/MGLTools | Moleküler Grafik Laboratuvarı, Scripps Research | 1.5.7 | Moleküler yapı ve kenetlenme girdi hazırlama araç kiti. |
| GROMACS analiz araçları | GROMACS geliştirme ekibi / açık kaynak | 2024.2 | Moleküler dinamik yörünge analiz araçları. |
| CHARMM-GUI altı adımlı protokol | CHARMM-GUI / Lehigh Üniversitesi | Web protokolü; kesin sürüm belirlenemedi | Web tabanlı çok aşamalı moleküler sistem hazırlama ve dengeleme iş akışı. |
| cgenff_charmm2gmx_py3.py | Açık kaynaklı dönüştürme betiği; kaynak makalede belirtilmemiştir | Sürüm makalede belirtilmemiştir | Kuvvet alanı topolojisi dönüştürme betiği. |
| Python | Python Yazılım Vakfı | 3.9 | Genel amaçlı programlama ortamı. |
| SciPy | SciPy topluluğu / açık kaynak | Sürüm makalede belirtilmemiştir | Bilimsel hesaplama kütüphanesi. |
| scipy.stats.fisher_exact | SciPy topluluğu / açık kaynak | SciPy sürümü makalede belirtilmemiştir | Fisher’s kesin test uygulaması. |
| R | R İstatistiksel Hesaplama Vakfı | 4.3.x | İstatistiksel hesaplama ortamı. |
| Bioconductor | Bioconductor projesi / açık kaynak | 3.18 | Biyoenformatik yazılım çerçevesi. |
| limma | Bioconductor projesi / açık kaynak | Sürüm makalede belirtilmemiştir | Diferansiyel gen ekspresyon analizi paketi. |
| Benjamini–Hochberg prosedürü | İstatistiksel yöntem | Uygulanamaz (istatistiksel prosedür) | Yanlış keşif oranı düzeltme yöntemi. |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080; ≥8 GB VRAM; CUDA/sürücü sürümü makalede belirtilmemiştir | En az 8 GB video belleğine sahip grafik işlem birimi. |
| CUDA uyumlu GPU | NVIDIA Corporation | CUDA araç kiti sürümü makalede belirtilmemiştir; ≥8 GB VRAM | Genel amaçlı paralel hesaplamayı destekleyen grafik işlem birimi. |
| Ubuntu Linux 22.04 LTS | Canonical Ltd. / açık kaynak | 22.04 LTS | 64-bit Linux işletim sistemi. |
| TIP3P | CHARMM kuvvet alanı geliştiricileri / açık kaynak | TIP3P; uygulanabilir yazılım sürümü yoktur | Üç bölgeli açık su modeli. |
| MM/PBSA | gmx_MMPBSA geliştiricileri / açık kaynak | gmx_MMPBSA 1.5.x | Moleküler mekanik/Poisson–Boltzmann yüzey alanı bağlanma enerjisi yöntemi. |
Kaynaklar
- Ford AC, Lacy BE, Talley NJ. Irritable bowel syndrome. N Engl J Med. 2017;376(26):2566–2578.
- Sperber AD, et al. Worldwide prevalence and burden of functional gastrointestinal disorders: results of the Rome Foundation Global Study. Gastroenterology. 2021;160(1):99–114.e3.
- Chang L, et al. AGA clinical practice guideline on the pharmacological management of irritable bowel syndrome with constipation. Gastroenterology. 2022;163(1):118–136.
- Lacy BE, et al. ACG clinical guideline: management of irritable bowel syndrome. Am J Gastroenterol. 2021;116(1):17–44.
- Lavelle A, Sokol H. Gut microbiota-derived metabolites as key actors in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(4):223–237.
- Morrison DJ, Preston T. Formation of short-chain fatty acids by the gut microbiota and their impact on human metabolism. Gut Microbes. 2016;7(3):189–200.
- Ridlon JM, et al. Consequences of bile salt biotransformations by intestinal bacteria. Gut Microbes. 2016;7(1):22–39.
- Roager HM, Licht TR. Microbial tryptophan catabolites in health and disease. Nat Commun. 2018;9(1):3294. doi:10.1038/s41467-018-05470-4.
- Krautkramer KA, Fan J, Bäckhed F. Gut microbial metabolites as multi-kingdom intermediates. Nat Rev Microbiol. 2021;19(2):77–94.
- Pittayanon R, et al. Gut microbiota in patients with irritable bowel syndrome: a systematic review. Gastroenterology. 2019;157(1):97–108.
- Hopkins AL. Network pharmacology: the next paradigm in drug discovery. Nat Chem Biol. 2008;4(11):682–690.
- O’Boyle NM, et al. Open Babel: an open chemical toolbox. J Cheminform. 2011;3:33. doi:10.1186/1758-2946-3-33.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi:10.1038/srep42717.
- Szklarczyk D, et al. STITCH 5: augmenting protein–chemical interaction networks with tissue and affinity data. Nucleic Acids Res. 2016;44(D1):D380–D384.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(D1):D991–D995.
- Edgar R, Domrachev M, Lash AE. Gene Expression Omnibus: NCBI gene expression and hybridization array data repository. Nucleic Acids Res. 2002;30(1):207–210.
- Swan C, et al. Identifying and testing candidate genetic polymorphisms in irritable bowel syndrome: association with TNFSF15 and TNFα. Gut. 2013;62(7):985–994.
- Ritchie ME, et al. Limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi:10.1093/nar/gkv007.
- Szklarczyk D, et al. The STRING database in 2023: protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Gillespie M, et al. The Reactome pathway knowledgebase 2022. Nucleic Acids Res. 2022;50(D1):D687–D692.
- Ashburner M, et al. Gene Ontology: tool for the unification of biology. Nat Genet. 2000;25(1):25–29.
- Gene Ontology Consortium, et al. The Gene Ontology knowledgebase in 2023. Genetics. 2023;224(1):iyad031. doi:10.1093/genetics/iyad031.
- Berman HM, et al. The Protein Data Bank. Nucleic Acids Res. 2000;28(1):235–242.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898.
- Trott O, Olson AJ. AutoDock Vina: improving the speed and accuracy of docking. J Comput Chem. 2010;31(2):455–461.
- Vanommeslaeghe K, et al. CHARMM general force field: a force field for drug-like molecules compatible with the CHARMM all-atom additive biological force fields. J Comput Chem. 2010;31(4):671–690.
- Huang J, MacKerell AD Jr. CHARMM36 all-atom additive protein force field: validation based on comparison to NMR data. J Comput Chem. 2013;34(25):2135–2145.
- Jorgensen WL, et al. Comparison of simple potential functions for simulating liquid water. J Chem Phys. 1983;79(2):926–935.
- Abraham MJ, et al. GROMACS: high-performance molecular simulations through multi-level parallelism from laptops to supercomputers. SoftwareX. 2015;1–2:19–25.
- Jo S, Kim T, Iyer VG, Im W. CHARMM-GUI: a web-based graphical user interface for CHARMM. J Comput Chem. 2008;29(11):1859–1865.
- Wu EL, et al. CHARMM-GUI Membrane Builder toward realistic biological membrane simulations. J Comput Chem. 2014;35(27):1997–2004.
- Lomize MA, et al. OPM database and PPM web server: resources for positioning proteins in membranes. Nucleic Acids Res. 2012;40(D1):D370–D376.
- Darden T, York D, Pedersen L. Particle mesh Ewald: an N log(N) method for Ewald sums in large systems. J Chem Phys. 1993;98(12):10089–10092.
- Hess B, Bekker H, Berendsen HJC, Fraaije JGEM. LINCS: a linear constraint solver for molecular simulations. J Comput Chem. 1997;18(12):1463–1472.
- Valdés-Tresanco MS, Valdés-Tresanco ME, Valiente PA, Moreno E. gmx_MMPBSA: a new tool to perform end-state free-energy calculations with GROMACS. J Chem Theory Comput. 2021;17(10):6281–6291.
- Fiorucci S, Distrutti E. Bile acid-activated receptors, intestinal microbiota, and the treatment of metabolic disorders. Trends Mol Med. 2015;21(11):702–714.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41–50.
- Gershon MD, Tack J. The serotonin signaling system: from basic understanding to drug development for functional gastrointestinal disorders. Gastroenterology. 2007;132(1):397–414.
- Kim K, et al. Structure of a hallucinogen-activated Gq-coupled 5-HT2A serotonin receptor. Cell. 2020;182(6):1574–1588.e19.
- Ballesteros JA, Weinstein H. Integrated methods for the construction of three-dimensional models and computational probing of structure–function relations in G protein-coupled receptors. In: Sealfon SC, editor. Receptor Molecular Biology. Methods in Neurosciences. Vol. 25. San Diego: Academic Press; 1995. p. 366–428.
- McCorvy JD, Roth BL. Structure and function of serotonin G protein-coupled receptors. Pharmacol Ther. 2015;150:129–142.
- Klauda JB, et al. Update of the CHARMM all-atom additive force field for lipids: validation on six lipid types. J Phys Chem B. 2010;114(23):7830–7843.
- Lee J, et al. CHARMM-GUI input generator for NAMD, GROMACS, AMBER, OpenMM, and CHARMM/OpenMM simulations using the CHARMM36 additive force field. J Chem Theory Comput. 2016;12(1):405–413.
- Genheden S, Ryde U. The MM/PBSA and MM/GBSA methods to estimate ligand-binding affinities. Expert Opin Drug Discov. 2015;10(5):449–461.
- Kollman PA, et al. Calculating structures and free energies of complex molecules: combining molecular mechanics and continuum models. Acc Chem Res. 2000;33(12):889–897.
- Cryan JF, et al. The microbiota–gut–brain axis. Physiol Rev. 2019;99(4):1877–2013.
- Koh A, De Vadder F, Kovatcheva-Datchary P, Bäckhed F. From dietary fiber to host physiology: short-chain fatty acids as key bacterial metabolites. Cell. 2016;165(6):1332–1345.
- Tan J, et al. The role of short-chain fatty acids in health and disease. Adv Immunol. 2014;121:91–119.
- Agus A, Planchais J, Sokol H. Gut microbiota regulation of tryptophan metabolism in health and disease. Cell Host Microbe. 2018;23(6):716–724.