Bu çalışma, sistemik lupus eritematozus ile tekrarlayan gebelik kaybı arasındaki ilişkiyi incelemekte ve IFI27'yi gelecekteki araştırmalar için aday bir biyobelirteç olarak tanımlamaktadır.
Araştırma makalesi
Mendelyen Randomizasyon ve Biyoenformatik, Sistemik Lupus Eritematozusunda Tekrarlayan Gebelik Kayıpları İçin Aday Bir Biyobelirteç Olarak IFI27'yi Tanımlıyor
* These authors contributed equally
Bu makalede
Özet
Özet
Sistemik lupus eritematozus (SLE), olumsuz gebelik sonuçlarıyla ilişkilidir, ancak tekrarlayan gebelik kaybı (RPL) ile olan nedensel ilişkisi ve paylaştıkları moleküler özellikler belirsizliğini korumaktadır. Bu çalışma, bu ilişkiyi araştırmak ve ortak aday biyobelirteçleri belirlemek için çift yönlü iki örneklemli Mendel randomizasyonunu (MR) ve transkriptomik biyoinformatik analizleri entegre etmiştir. Geniş, örtüşmeyen, Avrupa kökenli genom çapında ilişkilendirme çalışması (GWAS) özet istatistikleri sağladıkları için FinnGen ve UK Biobank seçilmiştir. Diferansiyel ekspresyon gösteren genler (DEG'ler), düzeltilmiş P < 0.05 kullanılarak GSE61635 (kan; |log₂ kat değişimi| > 1) ve GSE165004 (endometriyum; |log₂ kat değişimi| > 0.5) verilerinden tanımlanmış; ardından fonksiyonel zenginleştirme, protein-protein etkileşimi (PPI) analizi, hub-gen taraması, en küçük mutlak büzülme ve seçim operatörü (LASSO) regresyonu, GSE50772 ve GSE198700 kullanılarak harici doğrulama, işlem karakteristik eğrisi (ROC) analizi ve tek örneklemli gen seti zenginleştirme analizi (ssGSEA) uygulanmıştır. Genetik olarak öngörülen SLE, spontan düşüklerde istatistiksel olarak anlamlı ancak niceliksel olarak düşük bir artışla ilişkilendirilmiştir (ters varyans ağırlıklı [IVW] olasılık oranı [OR] = 1.01, %95 güven aralığı [CI] = 1.00–1.02; P < 0.001). Araç gücü yeterli bulunmuş ve duyarlılık analizleri herhangi bir belirgin heterojenlik, yönlü pleiotropi veya etkili tekil varyant tespit etmemiştir. Elli dokuz ortak DEG; antiviral bağışıklık yanıtları, hücre yapışması ve apoptozla ilgili süreçlerde zenginleşmiştir. IFI27'nin SLE kanında tutarlı bir şekilde aşırı eksprese olduğu, ancak RPL endometriyumunda ve koryonik villuslarında düşük eksprese olduğu görülürken, CXCL11 tutarlı bir harici doğrulama göstermemiştir. Retrospektif ROC analizleri, SLE için 0.822 ve RPL için 0.872 eğri altı alan (AUC) değerleri vermiştir. Hesaplamalı olarak çıkarılan ssGSEA skorları, IFI27 ekspresyonu ile T yardımcı 2 (Th2) hücreleri dahil olmak üzere çeşitli immün hücre imzaları arasında korelasyonlar olduğunu göstermiştir. Bu bulgular, IFI27'yi SLE ve RPL tarafından paylaşılan bir aday biyobelirteç olarak tanımlamaktadır; ancak, biyolojik ve klinik önemini doğrulamak için prospektif klinik ve deneysel çalışmalara ihtiyaç duyulmaktadır.
Giriş
Sistemik lupus eritematozus (SLE), çoklu sistem tutulumu ve kronik immün disregülasyon ile karakterize kompleks bir otoimmün hastalıktır1. SLE'deki patolojik anomaliler temel olarak bozulmuş adaptif immün yanıtlara ve antijen-antikor komplekslerinin birikimine bağlanır; bu durum otoimmün aracılı doku hasarına ve organ hasarına yol açar2,3. SLE'nin küresel insidansı 100.000 kişi-yıl başına yaklaşık 5,14 (1,4–15,13) vaka olup, kadınlarda tahmini insidans 100.000 kişi-yıl başına 8,82 (2,4–25,99) vakadır4. SLE her yaştan bireyi etkiler ancak ağırlıklı olarak reprodüktif çağdaki kadınlarda görülür5,6. SLE'li gebe hastalar; tekrarlayan düşük, ölü doğum, prematüre doğum ve intrauterin büyüme geriliği dahil olmak üzere olumsuz gebelik sonuçları açısından artmış risk altındadırlar7,8. Tekrarlayan gebelik kaybı (RPL), gestasyonun 20–24. haftasından önce meydana gelen iki veya daha fazla düşük olarak tanımlanır9. Bildirilen prevalansı yaklaşık %2,6'dır10, bu da onu klinik olarak önemli bir reprodüktif komplikasyon haline getirir. SLE'li gebe hastaların yaklaşık %20'si düşük yaşamaktadır11 ve SLE, RPL için önemli bir risk faktörü olarak kabul edilir12. Öne sürülen mekanizmalar arasında hormonal değişiklikler ve immün disregülasyon yer almaktadır. Antikardiyolipin antikorları ve lupus antikoagülanı gibi biyobelirteçler, SLE'li hastalarda olumsuz gebelik sonuçlarının potansiyel öngörücüleri olarak araştırılmıştır11. Bu otoantikorlar plasental trofoblast hücrelerine bağlanabilir; trofoblast sinyalizasyonunu, proliferasyonunu ve invazyonunu değiştirebilir, hormon ve sitokin salınımını modüle edebilir ve apoptozu artırabilir, böylece bozulmuş gebelik sonuçlarına katkıda bulunabilir13. Ayrıca, antifosfolipid sendromunda temel bir antijen olan beta-2 glikoprotein I (β2-GPI), plasental dokuda eksprese edilir. Anti-β2-GPI antikorlarının β2-GPI'ye bağlanması trofoblast büyümesini ve farklılaşmasını inhibe ederek plasental defektlerle sonuçlanır. Bu etkileşim aynı zamanda yıkıcı sitokin üretimi ve kompleman aktivasyonu ile karakterize pro-inflamatuar bir ortamı teşvik ederek plasental tromboza ve tekrarlayan düşükle katkıda bulunur14,15. Ancak, önceki çalışmalar genellikle decidua gibi lokal reprodüktif dokuların kapsamlı analizlarından yoksun kalmıştır; bu da sistemik biyobelirteçleri lokal patolojik değişikliklerle ilişkilendirme yeteneğini sınırlandırmıştır. Dahası, SLE ile komplike olan gebeliklerin yönetimi ve olumsuz gebelik sonuçlarının önlenmesi zorlayıcı olmaya devam etmektedir. Genetik yatkınlık SLE'nin gelişimine katkıda bulunur ve genetik varyasyonun RPL patogenezinde de rol oynadığı belirtilmiştir16,17. Buna rağmen, SLE ve RPL arasında nedensel bir ilişki olup olmadığı ile birlikte var olmalarının temelindeki moleküler mekanizmalar ve ortak genler belirsizliğini korumaktadır.
Mendelian randomizasyon (MR), maruziyetlerin hastalık sonuçları üzerindeki nedensel etkilerini tahmin etmek için genetik varyantları araç değişkenler olarak kullanan, nedensel çıkarım için yerleşik bir yaklaşımdır18. MR, genotip ve fenotip arasındaki ilişkiyi kullanarak, geleneksel gözlemsel çalışmalara kıyasla karıştırıcı faktörlerden ve ters nedensellikten kaynaklanan yanlılığı azaltır. Buna paralel olarak, genomik mikroarray platformları ve yüksek kapasiteli dizilemedeki ilerlemeler, biyoinformatik analizlerin transkriptomik profilleme yoluyla aday diyagnostik biyobelirteçleri ve terapötik hedefleri tanımlamasına olanak sağlamıştır. Bu tamamlayıcı yaklaşımların entegre edilmesi, nedensel genetik kanıtları hastalıkla ilişkili gen ekspresyon paternleri ile birleştirerek SLE ve RPL arasındaki ilişkinin daha kapsamlı bir şekilde anlaşılmasını sağlayabilir. Bu nedenle, bu çalışma SLE ve RPL arasındaki potansiyel nedensel ilişkiyi araştırmayı, ortak aday biyobelirteçleri ve biyolojik yolakları belirlemeyi ve gelecekteki doğrulamalar için hedefleri önceliklendirmeyi amaçlamıştır. Bu hedeflere ulaşmak için analitik iş akışı şu şekilde önceden belirlenmiştir: nedensel yönü değerlendirmek için çift yönlü MR; bağımsız diferansiyel gen ekspresyon analizleri ve ardından transkriptomik entegrasyon; biyobelirteç önceliklendirmesi için protein-protein etkileşim (PPI) ağı analizi ve en küçük mutlak daraltma ve seçme operatörü (LASSO) regresyonu; harici ekspresyon doğrulaması ve alıcı işletim karakteristiği (ROC) analizi; ve immün hücre imzalarıyla ilişkileri değerlendirmek için tek örneklem gen seti zenginleştirme analizi (ssGSEA). Bu adım adım iş akışı Şekil 1'de özetlenmiştir.
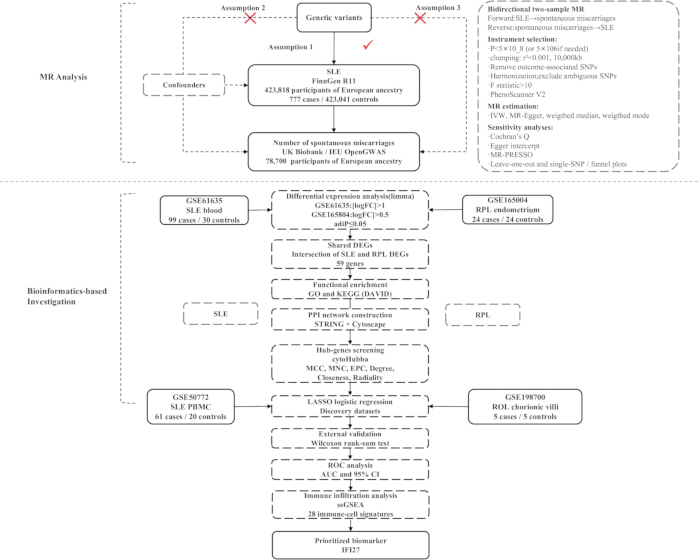
Şekil 1. Çalışma tasarımı ve analitik iş akışı.
Üst panel, genom çapında ilişkilendirme çalışması (GWAS) özet istatistiklerini kullanarak sistemik lupus eritematosus (SLE) ile spontan düşük sayısı arasındaki ilişkiyi değerlendiren çift yönlü iki örneklemli Mendel randomizasyon (MR) analizini göstermektedir. Enstrüman seçimi, bağlantı dengesi kümelemesi (linkage disequilibrium clumping), Mendel randomizasyon (MR) analizleri ve duyarlılık analizleri özetlenmiştir. Alt panel; diferansiyel ekspresyon analizi, ortak diferansiyel eksprese edilen genlerin (DEG'ler) tanımlanması, fonksiyonel zenginleştirme analizi, protein-protein etkileşim (PPI) ağı oluşturma, merkez gen (hub-gene) taraması, en küçük mutlak daralma ve seçim operatörü (LASSO) regresyonu, harici doğrulama, alıcı işletim karakteristikli (ROC) analiz, tek örneklemli gen seti zenginleştirme analizi (ssGSEA) ve aday biyobelirteç IFI27'nin önceliklendirmesini içeren biyoinformatik iş akışını ana hatlarıyla belirtmektedir. IVW, ters varyans ağırlıklı; KEGG, Kyoto Gen ve Genom Ansiklopedisi; GO, Gen Ontolojisi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Protokol
Bu çalışma, yalnızca kamuya açık, kimliksizleştirilmiş genom çapında ilişkilendirme çalışması (GWAS) özet istatistiklerinin ve transkriptomik veri kümelerinin ikincil analizlerini içerdiğinden etik onay gerektirmemiştir. Yeni katılımcı alınmamış, biyolojik örnek toplanmamış ve birey düzeyinde tanımlanabilir herhangi bir bilgiye erişilmemiştir. Orijinal FinnGen, UK Biobank ve Gene Expression Omnibus çalışmaları, etik onayın ve bilgilendirilmiş onamın ilgili kurumsal, ulusal ve veri tabanına özgü gerekliliklere uygun olarak alındığını bildirmiştir. Bu çalışmada kullanılan tüm veri kümelerine, geçerli veri tabanı kullanım politikaları, veri erişim koşulları ve etik yönergelere uygun olarak erişilmiş ve analiz edilmiştir. Yazarlar, herhangi bir katılımcının kimliğini yeniden tespit etmeye çalışmamıştır. Bu nedenle, bu ikincil analiz için ek yazılı bilgilendirilmiş onam gerekmemiştir. Bu çalışmanın içeriği iki bölümden oluşmaktadır: MR analizi ve biyoinformatik analiz (Şekil 1). Bu çalışma tamamen hesaplamalıdır ve kamuya açık özet düzeyindeki GWAS ve transkriptomik veri kümelerini kullanmıştır. Herhangi bir ıslak laboratuvar reaktifi veya sarf malzemesi kullanılmamıştır.
MR analizi
GWAS özet istatistiklerinin veri kaynakları, edinimi ve ön işlemesi:
Lupus eritematozus için GWAS özet istatistikleri, popülasyon tabanlı bir Fin kohortu olan FinnGen Release 11'den (finngen_R11_L12_LUPUS; RRID:SCR_022254) elde edilmiştir. Fenotip, ICD-10 kodu L93 kullanılarak tanımlanmış olup 777 vaka ve 423.041 kontrol dahil olmak üzere toplam 423.818 katılımcıyı kapsamaktadır. FinnGen özet istatistikler dosyası, FinnGen kamu veri portalından sıkıştırılmış sekmeyle ayrılmış formatta indirilmiş ve veri setinin maruziyet veya sonuç olarak kullanılmasına bağlı olarak TwoSampleMR paketindeki read_exposure_data() veya read_outcome_data() fonksiyonu kullanılarak R'ye aktarılmıştır. rsID, kromozom, genomik konum, efekt alleli, diğer allel, efekt alleli frekansı, beta katsayısı, standart hata ve ilişkilendirme P değeri korunmuştur.
78.700 katılımcıdan oluşan spontan düşük sayısına ilişkin özet istatistikler, IEU OpenGWAS kaynağı (ukb-b-419; RRID:SCR_012815) aracılığıyla UK Biobank'ten elde edilmiştir. İleri analizde, seçilen FinnGen tek nükleotid polimorfizmlerinin (SNP'ler) sonuçla olan ilişkileri extract_outcome_data(outcomes = "ukb-b-419", proxies = FALSE) kullanılarak geri çağrılmıştır. Ters analizde, lupus erythematosus ile ilişkili SNP'ler extract_instruments(outcomes = "finngen_R11_L12_LUPUS", clump = FALSE) kullanılarak geri çağrılmış ve ardından ilgili SNP ilişkileri UK Biobank özet istatistikler dosyasından çıkarılmıştır. Çift yönlü MR analizlerinde kullanılan GWAS veri setlerinin özellikleri Tablo 1'de özetlenmiştir.
| Karakteristik özellik | Örneklem büyüklüğü | Soyağacı | Konsorsiyum | Yıl | GWAS veri seti tanımlayıcısı |
| Lupus eritematozus | 4,23,818 | Avrupa | FinnGen (RRID: SCR_022254) | 2024 | finngen_R11_L12_LUPUS |
| Spontan düşük sayısı | 78,700 | Avrupalı | UK Biobank (RRID: SCR_012815) | 2018 | ukb-b-419 |
Tablo 1: Çift yönlü Mendelyen randomizasyon analizi için kullanılan genom çapında ilişkilendirme çalışması (GWAS) özet istatistikleri.
Tablo; örneklem büyüklüğü, soy, veri kaynağı, verilerin yayınlandığı yıl ve veri seti tanımlayıcısı dahil olmak üzere, ileri ve geri yönlü Mendelyen randomizasyon analizlerinde maruziyet ve sonuç kaynakları olarak kullanılan ve halka açık olan genom çapında ilişkilendirme çalışması veri setlerini özetlemektedir.
FinnGen ve UK Biobank, örtüşmeyen kaynak popülasyonlardan türetilmiş, büyük, kamuya açık ve ağırlıklı olarak Avrupa kökenli veri setleri sağlamaları ve iki örneklemli MR için yeterli varyant kapsamına sahip olmaları nedeniyle seçilmiştir. Maruziyet ve sonuç örneklemleri arasında herhangi bir örtüşme bildirilmemiştir. Yalnızca özet düzeydeki veriler kullanıldığı için, birey düzeyinde genotip verilerine erişilmemiş, katılımcı düzeyinde ek bir normalleştirme yapılmamış ve mevcut araştırmacılar tarafından herhangi bir katılımcı hariç tutulmamıştır. Orijinal GWAS konsorsiyumları tarafından uygulanan örneklem düzeyindeki ve varyant düzeyindeki kalite kontrol prosedürlerine güvenilmiştir. Mevcut analiz sırasında, aşağıda açıklandığı üzere; anlamlılık filtrelemesi, bağlantı dengesizliği kümelemesi (clumping), alel armonizasyonu, instrument gücü değerlendirmesi ve pleiotropi taraması yoluyla varyant düzeyinde ek kalite kontrol işlemleri gerçekleştirilmiştir.
FinnGen Release 11, genomik pozisyonları GRCh38/hg38'e göre raporlarken, IEU OpenGWAS harmonize edilmiş veri setleri ve bağlantı dengesi (linkage disequilibrium) referans kaynağı GRCh37 uyumlu varyant anotasyonlarını kullanmaktadır. Bu nedenle, maruziyet ve sonuç varyantları, kromozom-pozisyon koordinatlarından ziyade öncelikle stabil rsID'ler aracılığıyla eşleştirilmiştir. Doğrudan versiyonlar arası (cross-build) pozisyonel eşleştirme yapılmamıştır. Belirsiz bir rsID'ye sahip olan veya veri setleri arasında tutarsız alel bilgisi içeren varyantlar, MR analizinden önce hariç tutulmuştur. FinnGen Release 11 özet istatistikleri GRCh38 kullanırken, OpenGWAS verileri Build 37 için kullanılan referans dizilim kuralına göre harmonize edilmiştir. Bu nedenle, iki kaynak birleştirildiğinde rsID ile eşleştirme yapılması önemlidir.
MR'nin çalışma tasarımı:
STROBE-MR kılavuzlarına kesinlikle bağlı kaldık (Ek Dosya 1)19Genetik olarak öngörülen lupus eritematozus ile spontan düşük sayısı arasındaki ilişkiyi değerlendirmek için çift yönlü iki örneklemli MR tasarımı kullanılmıştır. İleri analizde, lupus eritematozus maruziyet, spontan düşük sayısı ise sonuç olarak ele alınmıştır. Ters analizde, maruziyet ve sonuç yer değiştirmiş; araç seçimi, bağlantı dengesizliği kümelemesi (linkage disequilibrium clumping), veri harmonizasyonu, nedensel kestirim ve duyarlılık analizi iş akışının tamamı tekrarlanmıştır. Araç değişkenler (IV'ler) olarak tek nükleotid polimorfizmleri (SNP'ler) kullanılmıştır. İş akışının tamamı şu sırayla gerçekleştirilmiştir: GWAS özet istatistiklerinin elde edilmesi ve formatlanması; maruziyetle ilişkili SNP'lerin seçimi; mükerrer veya eksik açıklanmış varyantların çıkarılması; bağlantı dengesizliği kümelemesi; ilgili sonuç ilişkilerinin çıkarılması; doğrudan sonuçla ilişkili SNP'lerin hariç tutulması; maruziyet ve sonuç alellerinin harmonizasyonu; araç gücünün hesaplanması; potansiyel karıştırıcı fenotiplerin taranması; nedensel etkilerin kestirimi; heterojenlik ve yatay pleiotropinin değerlendirilmesi; Mendelian Randomization Pleiotropy RESidual Sum and Outlier (MR-PRESSO) aykırı değer tespiti; ve birini dışarıda bırakma (leave-one-out) ile tek SNP duyarlılık analizleri. Tüm MR analizleri R versiyon 4.4.2 (RRID:SCR_001905), TwoSampleMR versiyon 0.6.6 (RRID:SCR_019010), MRPRESSO versiyon 1.0 (RRID:SCR_023697) ve forestploter versiyon 1.1.2 kullanılarak uygulanmıştır. MR analizi üç temel varsayıma dayandırılmıştır. Birincisi, ilgililik varsayımına göre, seçilen SNP'ler maruziyetle güçlü bir şekilde ilişkili olmalıdır. İkincisi, bağımsızlık varsayımına göre, seçilen SNP'ler maruziyet-sonuç ilişkisini karıştıran faktörlerden bağımsız olmalıdır. Üçüncüsü, dışlama kısıtlaması varsayımına göre, seçilen SNP'ler sonucu yalnızca maruziyet aracılığıyla etkilemelidir.20 (Şekil 1).
SNP seçim yöntemleri:
Enstrüman seçimi şu sırayla gerçekleştirilmiştir: (1) P < 5 × 10⁻⁸ düzeyinde maruziyetle ilişkili SNP'lerin seçilmesi; enstrüman sayısı yetersiz olduğunda P < 5 × 10⁻⁶ değerinin kullanılması; (2) R2 < 0,001 ve 10.000 kb genetik mesafe ile bağlantı dengesizliği kümelemesi (linkage disequilibrium clumping) yapmak için clump_data() fonksiyonunun kullanılması; analiz edilebilir bir enstrüman setini korumak için yalnızca gerekli olduğunda kriterlerin 5.000 kb dahilinde R2 < 0,01 olarak esnetilmesi; (3) P = 5 × 10⁻⁵ eşik değeri kullanılarak sonuçla anlamlı şekilde ilişkili olan SNP'lerin filtrelenmesi; (4) maruziyet ve sonuç alellerini harmonize etmek ve palindromik veya diğer belirsiz varyantları dışlamak için harmonise_data() fonksiyonunun kullanılması; (5) enstrüman gücünün F = β2/SE2 olarak hesaplanması ve F < 10 olan SNP'lerin dışlanması; ve (6) korunmuş SNP'lerin, SLE–gebelik kaybı ilişkisini karıştırabilecek fenotipler için PhenoScanner V2'de taranması21. Antifosfolipid antikorlar (aPL), SLE ve spontan düşük sayısı için ortak bir risk faktörü olabilir. Bireysel SNP'ler PhenoScanner V2'de aranmıştır. Tüm aday SNP'ler, rapor edilen tüm genom çapında ilişkilendirme çalışması (GWAS) ilişkilerini geri çağırmak için varsayılan GWAS kataloğu kullanılarak PhenoScanner V2'de sorgulanmıştır. Anlamlılık eşiği P < 1 × 10⁻5 olarak belirlenmiş ve varsayılan referans genom yapısı (GRCh37) kullanılmıştır. Çalışma popülasyonu Avrupa kökenli olduğundan, 1.000-kb penceresi içinde R2 > 0,8 LD eşiği ile Avrupa referans paneli (proxies = "EUR") kullanılarak proxy varyant araması etkinleştirilmiştir. Diğer tüm arama parametreleri varsayılan ayarlarında tutulmuştur. Önceden belirlenmiş karıştırıcı faktör olan antifosfolipid antikorlar (aPL) ile anlamlı ilişkiler gösteren SNP'ler, potansiyel olarak pleiotropik kabul edilmiş ve Mendelyen randomizasyon dışlama kısıtlaması varsayımının ihlalini minimize etmek için nihai enstrümantal değişken setinden çıkarılmıştır. İleri ve ters MR analizleri için tutulan enstrümantal SNP'ler, sırasıyla Ek Tablo 1 ve 2'de listelenmiştir.
İstatistiksel analiz:
Enstrüman seçimi ve alel harmonizasyonunun ardından, nedensel tahminler TwoSampleMR'daki mr() fonksiyonu kullanılarak hesaplanmıştır. Analitik iş akışı şu sırayla gerçekleştirilmiştir. İlk olarak, genel nedensel etki dört MR yöntemi kullanılarak tahmin edilmiştir: ters varyans ağırlıklandırma (IVW), MR-Egger regresyonu, ağırlıklı medyan ve ağırlıklı mod. Spontan düşük sayısı ve SLE için etki tahminleri, ilgili %95 güven aralıkları ve P değerleri ile birlikte odds oranları olarak rapor edilmiştir. Dahil edilen tüm SNP'ler geçerli enstrümantal değişkenler olduğunda ve yatay pleiotropi mevcut olmadığında yüksek istatistiksel güç sağladığı için IVW yöntemi birincil analiz olarak belirlenmiştir. Ancak, yatay pleiotropi mevcut olduğunda IVW tahmini yanlı olabilir22. MR-Egger regresyonu, temel olarak potansiyel yatay pleiotropi varlığında nedensel çıkarımları değerlendirmek için kullanılmıştır23. Ağırlıklı medyan yaklaşımı, analitik ağırlığın en az %50'sinin geçerli IV'lerden gelmesini gerektirir. Bu yöntem, heterojenlik mevcut olduğunda ancak yatay pleiotropi yokken optimaldir24. Ağırlıklı mod, benzer nedensel etkilere sahip enstrümantal değişken kümelerini tanımlar ve etkiyi en büyük kümeden tahmin eder25. Dört MR yöntemi kullanılarak elde edilen etki tahminleri Şekil 2'de sunulmuştur. İkinci olarak, SNP'ye özgü nedensel tahminler arasındaki heterojenlik, mr_heterogeneity() fonksiyonu aracılığıyla uygulanan Cochran Q testi kullanılarak değerlendirilmiştir. Q istatistiği, bireysel SNP tahminlerinin genel nedensel tahminden olan kare sapmalarının ağırlıklı toplamını temsil eder. Q-testi P değerinin < 0.05 olması heterojenliğin kanıtı olarak kabul edilmiş ve bu durumda rastgele etkili bir IVW modeli uygulanmıştır. Anlamlı heterojenliğin yokluğunda, sabit etkili bir IVW modeli kullanılmıştır26. Üçüncü olarak, yönlü yatay pleiotropi, mr_pleiotropy_test() fonksiyonu ile uygulanan MR-Egger kesişim noktası testi kullanılarak değerlendirilmiştir. P < 0.05 seviyesinde sıfırdan anlamlı derecede farklı olan bir kesişim noktası, yönlü yatay pleiotropinin kanıtı olarak kabul edilmiştir. Dördüncü olarak, aykırı pleiotropik etkileri olan SNP'leri tespit etmek için MRPRESSO paketi (RRID:SCR_023697) içindeki mr_presso() fonksiyonu kullanılarak MR-PRESSO prosedürü gerçekleştirilmiştir27. Aykırı değerler tespit edildiğinde bunlar çıkarılmış ve nedensel analiz kalan enstrümanlar kullanılarak tekrarlanmıştır. MR-PRESSO global testi genel yatay pleiotropiyi değerlendirmek için kullanılmış ve aykırı değerlerin çıkarılmasının nedensel tahmini maddi olarak değiştirip değiştirmediği değerlendirilirken distorsiyon testi dikkate alınmıştır. Beşinci olarak, mr_leaveoneout() fonksiyonu kullanılarak "birini dışarıda bırakma" (leave-one-out) duyarlılık analizi yapılmıştır. Bu analizde, her bir SNP sırayla hariç tutulmuş ve havuzlanmış nedensel tahmin kalan SNP'ler kullanılarak yeniden hesaplanmıştır. Genel ilişkinin orantısız bir şekilde tek bir enstrüman tarafından yönlendirilip yönlendirilmediğini belirlemek için sonuçlar mr_leaveoneout_plot() kullanılarak görselleştirilmiştir. Altıncı olarak, mr_singlesnp() fonksiyonu kullanılarak bireysel SNP'ye özgü tahminler oluşturulmuştur. Bu tahminler, yönlü yatay pleiotropiye bağlanabilecek asimetriyi görsel olarak değerlendirmek için mr_funnel_plot() ile huni grafikleri (funnel plots) oluşturmakta kullanılmıştır. Farklı MR yöntemlerinden elde edilen etki tahminlerini ve güven aralıklarını görüntülemek için forestploter (versiyon 1.1.2) kullanılarak özet forest grafikleri oluşturulmuştur. İleri MR dağılım grafiği, SNP'ye özgü forest grafiği, birini dışarıda bırakma analizi ve huni grafiği sırasıyla Ek Şekil 1–4'te sunulmuştur.
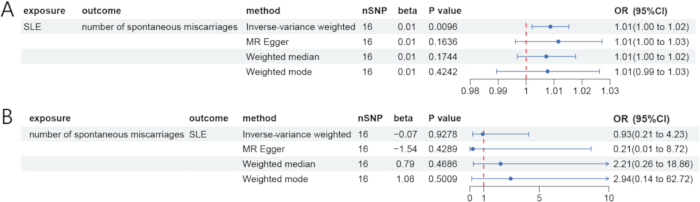
Şekil 2. Çift yönlü Mendelyen randomizasyon analizinin sonuçları.
(A) Maruziyet olarak sistemik lupus eritematözus (SLE) ve sonuç olarak spontan düşük sayısının alındığı ileri yönlü Mendelyen randomizasyon (MR) analizinin forest plot grafiği. (B) Maruziyet olarak spontan düşük sayısı ve sonuç olarak SLE'nin alındığı ters yönlü MR analizinin forest plot grafiği. Etki tahminleri; ters varyans ağırlıklı, MR-Egger, ağırlıklı medyan ve ağırlıklı mod yöntemleri için %95 güven aralıkları (CI'lar) ile birlikte odds oranları (OR'lar) olarak sunulmuştur. SNP, tek nükleotid polimorfizmi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
IVW tahmini P < 0.05 düzeyinde istatistiksel olarak anlamlı olduğunda, MR-Egger, ağırlıklı medyan ve ağırlıklı mod tahminleri IVW tahmini ile tutarlı yönler gösterdiğinde ve bulgular heterojenite, pleiotropi, MR-PRESSO veya tekli çıkarma (leave-one-out) duyarlılık analizleri ile önemli ölçüde değişmediğinde nedensel bir ilişki desteklenmiş olarak kabul edildi. Tüm istatistiksel testler çift yönlüydü.
Biyoenformatik analizi
Mikrodizilim verileri:
Transkriptomik veri setleri Gene Expression Omnibus (GEO; RRID:SCR_005012) veri tabanından elde edilmiştir28. GSE61635, GSE165004, GSE50772 ve GSE198700 için işlenmiş Seri Matrisi dosyaları, örnek meta verileri ve platform anotasyon dosyaları indirilmiştir. Her bir veri setinin platformu, doku kaynağı, örnek büyüklüğü ve analiz kategorisi Tablo 2'de özetlenmiştir. Veri setleri farklı dokulardan ve mikrodizilim platformlarından üretildiği için, her veri seti bağımsız olarak ön işleme tabi tutulmuş ve analiz edilmiştir. Farklı veri setlerinden elde edilen ekspresyon matrisleri doğrudan birleştirilmemiş ve platformlar arası herhangi bir grup düzeltmesi (batch correction) uygulanmamıştır. Veri setleri arası entegrasyon, yalnızca her bir keşif veri seti içinde diferansiyel ekspresyon analizi bağımsız olarak tamamlandıktan sonra gen sembolü düzeyinde gerçekleştirilmiştir.
| GEO veri seti | Hastalık | Platform | Doku (Homo sapiens) | Vakalar | Kontroller | Deney tipi | Katkıda Bulunan | Veri kümesi kategorisi |
| GSE61635 | Sistemik lupus eritematozus (SLE) | GPL570 | Tam kan | 99 | 30 | Ekspresyon mikroarray | Greidinger EL | Keşif veri seti |
| GSE165004 | Tekrarlayan gebelik kaybı (TGK) | GPL16699 | Endometriyum | 24 | 24 | Ekspresyon mikroarray | Keleş ID29 | Keşif veri seti |
| GSE50772 | Sistemik lupus eritematozus (SLE) | GPL570 | Periferik kan mononükleer hücreleri (PBMC'ler) | 61 | 20 | Ekspresyon mikroarray | Kennedy WP30 | Doğrulama veri seti |
| GSE198700 | Tekrarlayan gebelik kaybı (TGK) | GPL13534 | Koryonik villuslar | 5 | 5 | Ekspresyon mikroarray | Li Y31 | Doğrulama veri kümesi |
Tablo 2: Biyoenformatik analizler için kullanılan transkriptomik veri setleri.
Tablo; hastalık, mikroarray platformu, doku kaynağı, örnek büyüklüğü, deney tipi, orijinal çalışma katkıda bulunan kişi ve veri seti kategorisi dahil olmak üzere, keşif ve doğrulama analizlerine dahil edilen Gene Expression Omnibus (GEO) transkriptomik veri setlerini özetlemektedir.
GSE61635, Affymetrix Human Genome U133 Plus 2.0 Array platformu (GPL570) kullanılarak oluşturulmuştur ve bazı hastalardan alınan tekrarlı ziyaretler dahil olmak üzere SLE'li hastalardan alınan 99 tam kan dizisi ile bağımsız sağlıklı kontrollerden alınan 30 diziden oluşmaktadır. Depolanmış ekspresyon matrisi, orijinal araştırmacılar tarafından robust multiarray ortalama arka plan düzeltmesi, quantile normalizasyonu, prob seti özetlemesi ve log2 transformasyonuna tabi tutulmuştur. Bu nedenle, ikinci bir arkaplan düzeltmesi veya quantile normalizasyonu gerçekleştirilmemiştir. Hasta tanımlayıcıları GEO meta verilerinden çıkarılmış ve tekrarlanan ölçümler modellemesi için saklanmıştır.
GSE165004, Agilent SurePrint G3 Human Gene Expression v2 8×60K Microarray platformu (GPL16699) kullanılarak oluşturulmuştur. Tam veri seti 24 fertil kontrol, 24 RPL'li hasta ve 24 açıklanamayan infertiliteli hastadan oluşmaktaydı. Sadece menstrüasyon döngüsünün 19-21. günlerinde toplanan 24 RPL örneği ve 24 fertil kontrol örneği dahil edilmiş; 24 açıklanamayan infertilite örneği, önceden tanımlanmış karşılaştırmanın dışında kaldıkları için hariç tutulmuştur29. Veri setini sunan kişi tarafından normalize edilmiş ekspresyon matrisi kullanılmış ve kutu grafikleri ile yoğunluk grafikleri aracılığıyla örnek dağılımlarının karşılaştırılabilir olduğu onaylandıktan sonra diziler arası ek bir normalizasyon uygulanmamıştır.
GSE50772, bağımsız bir SLE doğrulama veri seti olarak kullanılmıştır ve GPL57030 kullanılarak oluşturulan 61 SLE hastası ve 20 sağlıklı kontrolden alınan periferik kan mononükleer hücre örneklerini içermektedir. GSE198700, GPL13534 kullanılarak oluşturulmuştur ve beş RPL hastası ile beş elektif abortus kontrolünden alınan koryon villus örneklerini içermektedir31. Kaydedilen ekspresyon matrisinin tamamı aktarılmış ve kaydedilen ekspresyon değerleri logaritmik olmayan bir ölçekte sunulduğu için log2(x + 1) kullanılarak bir kez dönüştürülmüştür. Bu dönüşüm; örnek düzeyinde kalite kontrolü, prob anotasyonu, gen düzeyinde özetleme, aday gen doğrulaması, diferansiyel ekspresyon analizi, grup karşılaştırma testleri ve ROC analizinden önce tüm ekspresyon matrisine uygulanmıştır. Aday genler ayrı olarak dönüştürülmemiş ve sonraki doğrulama analizleri sırasında ek bir logaritmik dönüşüm gerçekleştirilmemiştir. Tüm veri setleri için örnek kimlikleri, hastalık durumu, doku kaynağı ve grup etiketleri, analiz öncesinde ilgili GEO meta verileriyle çapraz kontrol edilmiştir. Kalite kontrolü; kütüphane boyutlarının veya ekspresyon dağılımlarının değerlendirilmesini, örnek bazlı kutu grafiklerini (boxplot), temel bileşen analizini, hiyerarşik kümelemeyi ve örnek mesafe ısı haritalarını içermiştir. Kalite kontrol değerlendirmesi sonucunda herhangi bir ek örnek dışlanmamıştır.
Diferansiyel ekspresyon analizi:
Diferansiyel ekspresyon analizleri, limma versiyon 3.60.6 (RRID:SCR_010943) kullanılarak GSE61635 ve GSE165004 için bağımsız olarak gerçekleştirilmiştir. Tüm ekspresyon matrisleri, satırlarda genler ve sütunlarda örnekler olacak şekilde düzenlenmiştir. Diferansiyel ekspresyon eşiği, Benjamini–Hochberg (BH) düzeltmeli P < 0,05 olmak üzere GSE61635 için |log₂ fold change| > 1 ve GSE165004 için |log₂ fold change| > 0,5 olarak belirlenmiştir. Volcano grafikleri ggplot2 versiyon 3.5.1 (RRID:SCR_014601) kullanılarak oluşturulmuştur. Düzeltilmiş P değerine göre sıralanan en anlamlı 50 diferansiyel eksprese olmuş genin (DEG) ısı haritaları pheatmap versiyon 1.0.12 (RRID:SCR_016418) kullanılarak oluşturulmuştur. Ortak DEG'ler, anlamlı SLE ve RPL DEG listelerindeki resmi gen sembolleri temel R intersect() fonksiyonuyla kesiştirilerek belirlenmiş ve ggvenn versiyon 0.1.16 (RRID:SCR_025300) kullanılarak görselleştirilmiştir. Diferansiyel ekspresyon ısı haritaları, volcano grafikleri ve SLE ile RPL DEG listelerinin kesişimi Şekil 3'te sunulmuştur.
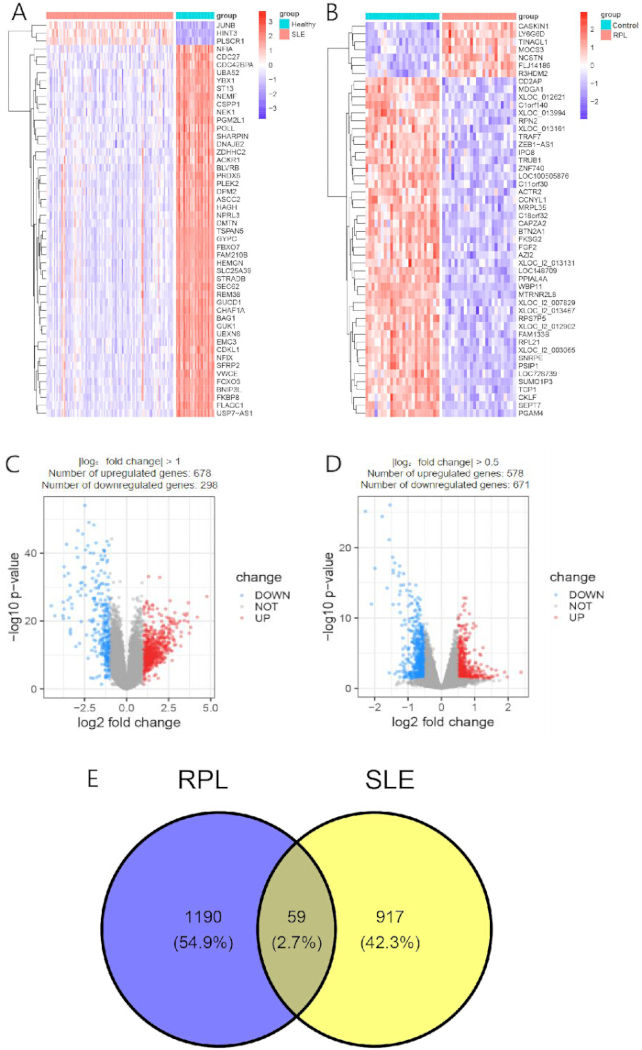
Şekil 3. Sistemik lupus eritematozus ve tekrarlayan gebelik kaybında farklı ifade edilen genler.
(A) GSE61635'te sistemik lupus eritematozus (SLE) hastaları ile sağlıklı kontroller arasında en anlamlı 50 farklı ifade edilen genin (DEG'ler) ısı haritası. (B) GSE165004'te tekrarlayan gebelik kaybı (RPL) olan hastalar ile fertil kontroller arasında en anlamlı 50 DEG'in ısı haritası. (C) GSE61635'teki diferansiyel gen ekspresyonunun yanardağ grafiği. (D) GSE165004'teki diferansiyel gen ekspresyonunun yanardağ grafiği. (E) SLE ve RPL keşif veri setlerinden elde edilen anlamlı DEG listeleri arasındaki örtüşmeyi gösteren Venn diyagramı. DEGs, farklı ifade edilen genler. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Kesişim DEG'lerin fonksiyonel zenginleştirme analizi:
DEG fonksiyonlarının moleküler düzeydeki analizi için, Gene Ontology (GO) fonksiyonel ve Kyoto Encyclopedia of Genes and Genomes (KEGG) yolak zenginleştirme analizlerini gerçekleştirmek üzere DAVID çevrimiçi aracı (versiyon 2021; RRID:SCR_001881)32 kullanılmıştır. Tanımlayıcı türü olarak resmi insan gen sembolleri yüklenmiş ve tür olarak Homo sapiens seçilmiştir. Özel arka plan popülasyonu, prob anotasyonu ile kalite kontrolünden geçen ve hem GSE61635 hem de GSE165004'te ölçülebilen tüm genlerin kesişiminden oluşturulmuştur. Minimum gen sayısı eşiği 2 olarak belirlenmiş ve DAVID'in modifiye edilmiş tek taraflı Fisher kesin P değerini temsil eden maksimum EASE skoru 0,05 olarak ayarlanmıştır. Çoklu karşılaştırmalar, DAVID "Benjamini" sütununda bildirilen Benjamini–Hochberg prosedürü kullanılarak kontrol edilmiştir. EASE skorunun < 0,05 ve Benjamini-düzeltilmiş P değerinin < 0,05 olduğu fonksiyonel terimler istatistiksel olarak anlamlı kabul edilmiştir. Terim adları, gen sayıları, EASE skorları, Benjamini-düzeltilmiş P değerleri, girdi-gen eşleşmeleri ve arka plan-gen eşleşmelerini içeren tam DAVID çıktısı, sekmeyle ayrılmış bir dosya olarak dışa aktarılmıştır. Filtrelenmiş DAVID sonuçlarını görselleştirmek için CNSknowall web sitesi kullanılmıştır. GO ve KEGG zenginleştirme sonuçları Şekil 4A'da sunulmuştur.
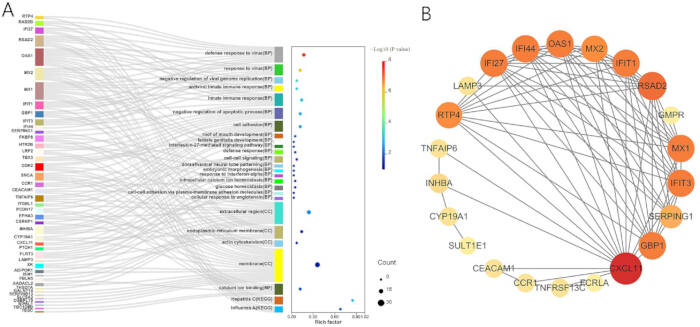
Şekil 4Ortak farklı şekilde ifade edilen genlerin fonksiyonel zenginleştirme analizi ve protein-protein etkileşim ağı.
(A) Paylaşılan 59 diferansiyel ekspresyon gösteren genin (DEG) Gen Ontolojisi (GO) ve Kyoto Gen ve Genom Ansiklopedisi (KEGG) zenginleştirme analizleri. Sankey diyagramı, genler ile zenginleşmiş GO terimleri arasındaki ilişkileri göstermekte; beraberindeki balon grafik ise zenginleşmiş GO ve KEGG terimlerini zenginleştirme faktörü, gen sayısı ve istatistiksel anlamlılığa göre özetlemektedir. (B) 59 paylaşılan DEG kullanılarak STRING ile oluşturulan ve Cytoscape'de görselleştirilen protein-protein etkileşim (PPI) ağı. Düğüm büyüklüğü ve rengi ağ bağlantısını yansıtmakta, kenarlar ise öngörülen protein-protein etkileşimlerini belirtmektedir. BP, biyolojik süreç; CC, hücresel bileşen; MF, moleküler fonksiyon. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
PPI ağı ve çekirdek genlerin belirlenmesi:
Paylaşılan DEG'ler, organizma olarak Homo sapiens (taksonomik tanımlayıcı: 9606) seçilerek STRING versiyon 11.0 (RRID:SCR_005223)33 platformuna yüklendi. Hem fonksiyonel hem de fiziksel protein ilişkilerine izin veren tam STRING ağı kullanıldı. Deneysel kanıtlar, küratörlü veri tabanları, ko-ekspresyon, metin madenciliği, gen komşuluğu, gen füzyonu ve gen ko-okürens dahil olmak üzere mevcut tüm kanıt kanalları etkinleştirildi.
Minimum gerekli etkileşim skoru, orta güven düzeyine karşılık gelen 0.400 olarak belirlenmiştir. Ek bir birinci veya ikinci katman etkileşime giren protein eklenmemiştir; bu nedenle ağ, yalnızca gönderilen ortak DEG'ler tarafından kodlanan proteinleri içermektedir. Ağ kenarları güven modu kullanılarak görüntülenmiş ve etkileşime giren proteinler ile kombine STRING skorlarını içeren sekmeyle ayrılmış değerler dosyası olarak dışa aktarılmıştır. STRING güven skorları, etkileşimin büyüklüğünü veya bağlanma gücünü değil, bir ilişkinin var olduğuna dair güven düzeyini temsil eder.
STRING ağ dosyası, Cytoscape versiyon 3.10.0'a (RRID:SCR_003032)34 aktarıldı. Ağ topolojisi analizinden35 önce, gönderilen diğer proteinlerle herhangi bir etkileşimi olmayan düğümler kaldırıldı. Geriye kalan ağ, yönlendirilmemiş bir ağ olarak değerlendirildi. Görselleştirme için STRING birleşik skorları kenar öznitelikleri olarak tutulurken, cytoHubba sıralamaları varsayılan ağırlıksız topolojik tanımlamalar kullanılarak oluşturuldu. Ortaya çıkan PPI ağı Şekil 4B'de sunulmuştur.
Hub genler; Maksimal Clique Centrality (MCC), Maximum Neighborhood Component (MNC), Edge Percolated Component (EPC), Degree, Closeness ve Radiality olmak üzere altı algoritma kullanılarak cytoHubba versiyon 0.1 (RRID:SCR_017677) ile sıralanmıştır36. Her algoritma için genler azalan sırada sıralanmış ve ilk 10 gen alınmıştır. Ağ hub adayları, altı adet ilk-10 listesinin katı kesişimi kullanılarak tanımlanmıştır. Böylece, bir gen ancak altı algoritmanın tamamı tarafından oluşturulan ilk 10 gen arasında yer aldığında ağ hub'ı olarak kabul edilmiştir. Sıralama ve kesişim prosedürü dışa aktarılmış ve arşivlenmiştir. Her bir cytoHubba algoritması tarafından belirlenen ilk 10 gen Tablo 3'te sunulmuştur.
| Sıra | Maksimal Klik Merkeziyeti (MCC) | Maksimum Komşuluk Bileşeni (MNC) | Kenar Sızdırmalı Bileşen (EPC) | Derece | Yakınlık | Radyalite |
| 1 | RSAD2 | RSAD2 | RSAD2 | RSAD2 | RSAD2 | RSAD2 |
| 2 | RTP4 | RTP4 | RTP4 | RTP4 | RTP4 | RTP4 |
| 3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 |
| 4 | IFI27 | IFI27 | IFI27 | IFI27 | IFI27 | IFI27 |
| 5 | IFI44 | IFI44 | IFI44 | IFI44 | IFI44 | IFI44 |
| 6 | GBP1 | GBP1 | GBP1 | GBP1 | GBP1 | GBP1 |
| 7 | MX1 | MX1 | MX1 | MX1 | MX1 | MX1 |
| 8 | OAS1 | OAS1 | OAS1 | OAS1 | OAS1 | OAS1 |
| 9 | IFIT1 | IFIT1 | IFIT1 | IFIT1 | IFIT1 | IFIT1 |
| 10 | CXCL11 | CXCL11 | CXCL11 | CXCL11 | CXCL11 | CXCL11 |
Tablo 3: Altı cytoHubba sıralama algoritması tarafından belirlenen ilk 10 hub gen.
Ortak diferansiyel ekspresyon gösteren genler, Cytoscape'in cytoHubba eklentisinde uygulanan altı ağ topolojisi algoritması kullanılarak sıralanmıştır. Her bir algoritma tarafından üretilen en yüksek sıralamaya sahip 10 gen; Maksimal Clique Centrality (MCC), Maximum Neighborhood Component (MNC), Edge Percolated Component (EPC), Derece, Yakınlık ve Radyalite üzerinden karşılaştırma amacıyla sunulmuştur.
Temel gen tanımlama için LASSO regresyonu:
LASSO lojistik regresyonu, glmnet versiyon 4.1-8 (RRID:SCR_015505) kullanılarak SLE ve RPL keşif veri setlerinde bağımsız olarak gerçekleştirilmiştir. Öngörücü matris, satırlarda örneklerin ve sütunlarda genlerin yer aldığı, ağ hub adaylarının normalize edilmiş ekspresyon değerlerinden oluşturulmuştur. Hastalık durumu 1, kontrol durumu ise 0 olarak kodlanmıştır. family = "binomial" ve alpha = 1 kullanılarak saf LASSO cezalı binomiyal genelleştirilmiş doğrusal model uygulanmıştır. Öngörücü değişkenler standardize = TRUE ile dahili olarak standardize edilmiş ve bir kesim noktası (intercept) eklenmiştir. SLE ve RPL veri setleri için sınıf-tabakalı 10 katlı (10-fold) atamalar, özel taban R kodu kullanılarak ayrı ayrı oluşturulmuştur. Her hastalık durumu tabakası içinde, örnek indeksleri rastgele karıştırılmış ve sample(rep(seq_len(10), length.out = n)) kullanılarak 10 kat arasında mümkün olduğunca eşit şekilde dağıtılmıştır. Tekrarlanabilirliği sağlamak amacıyla, her veri seti için kat atamaları oluşturulmadan önce 123 rastgele tohumu (random seed) ayarlanmıştır. Her hastalık durumu grubu 10'dan fazla örnek içerdiğinden, her çapraz doğrulama katı hem vakaları hem de kontrolleri içermiştir. Elde edilen tam sayı vektörleri (foldid_sle ve foldid_rpl), cv.glmnet() fonksiyonunun foldid argümanına sağlanmış ve ilgili veri seti içindeki değerlendirilen tüm λ değerleri için aynı kat atamaları kullanılmıştır.
Modeller; family = "binomial", alpha = 1, nfolds = 10, type.measure = "deviance", standardize = TRUE, intercept = TRUE, nlambda = 100, thresh = 1 × 10⁻7 ve maxit = 100000 parametreleri kullanılarak uyarlanmıştır. Ceza parametresi, minimum ortalama çapraz doğrulamalı binomial sapmayı (deviance) üreten lambda değeri olarak tanımlanan lambda.min kullanılarak seçilmiştir. Minimum çapraz doğrulama hatasının bir standart hata sınırları içindeki en büyük lambda olarak tanımlanan daha muhafazakâr lambda.1se, bir hassasiyet sonucu olarak kaydedilmiştir. LASSO prosedürü GSE61635 ve GSE165004 veri setlerine ayrı ayrı uygulanmıştır. Her iki hastalığa özgü modelde sıfır olmayan katsayılara sahip genler, ortak LASSO seçilmiş aday genler olarak tanımlanmıştır. L1 düzenleme terimi eklenerek, bu yöntem daha az bilgilendirici genlerin katsayılarını etkili bir şekilde sıfıra indirerek özellik seçimi gerçekleştirir37. SLE ve RPL keşif veri setleri için katsayı profilleri ve 10 katlı çapraz doğrulama eğrileri Şekil 5'te sunulmuştur.
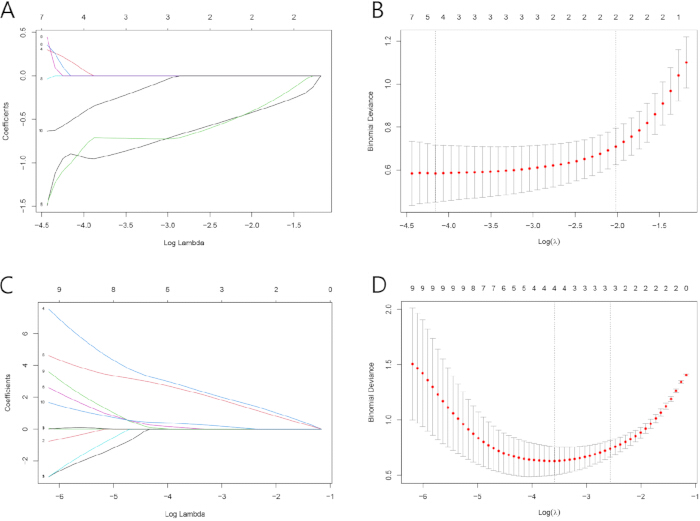
Şekil 5Ağ hub genlerinin en küçük mutlak daraltma ve seçim operatörü (LASSO) regresyon analizi.
(A) Sistemik lupus erythematosus (SLE) keşif veri seti (GSE61635) için en küçük mutlak büzülme ve seçim operatörü (LASSO) lojistik regresyonu ile oluşturulan katsayı profilleri. (B) Optimal ceza parametresini belirlemek için kullanılan on katlı çapraz doğrulama eğrisi (λ) SLE modeli için. (C) Tekrarlayan gebelik kaybı (RPL) keşif veri seti (GSE165004) için LASSO lojistik regresyonu ile oluşturulan katsayı profilleri. (D) Optimal ceza parametresini belirlemek için kullanılan on katlı çapraz doğrulama eğrisi (λ) RPL modeli için. Üst x-ekseni boyunca yer alan sayılar, her bir değerdeki sıfır olmayan regresyon katsayılarının sayısını belirtmektedir. λDikey kesikli çizgiler şunları belirtmektedir: λ_min ve λ_1sn. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayınız.
Çekirdek genlerin tanısal değerinin doğrulanması:
LASSO ile seçilen aday genlerin ekspresyon paternleri, bağımsız SLE veri seti GSE50772 ve bağımsız RPL veri seti GSE198700'de değerlendirildi. Harici veri setleri, ancak GSE61635 ve GSE165004'te aday gen seçimi tamamlandıktan sonra kullanıldı. Doğrulama veri setlerinde ek bir özellik seçimi veya model uydurma işlemi gerçekleştirilmedi. Aday gen ekspresyonu, vakalar ve kontroller arasında iki yönlü Wilcoxon sıra toplamı testi kullanılarak karşılaştırıldı. Bir veri seti içinde birden fazla aday gen test edildiğinde, elde edilen P değerleri Benjamini–Hochberg prosedürü kullanılarak düzeltildi. Bir aday genin ekspresyonu, çoklu test düzeltmesinden sonra vakalar ve kontroller arasında anlamlı şekilde farklılaştığında ve yönü ilgili keşif veri setiyle tutarlı olduğunda, haricen tekrarlanmış olarak kabul edildi. Aday genlerin keşif ve doğrulama veri setlerindeki ekspresyon paternleri Şekil 6'da sunulmuştur.
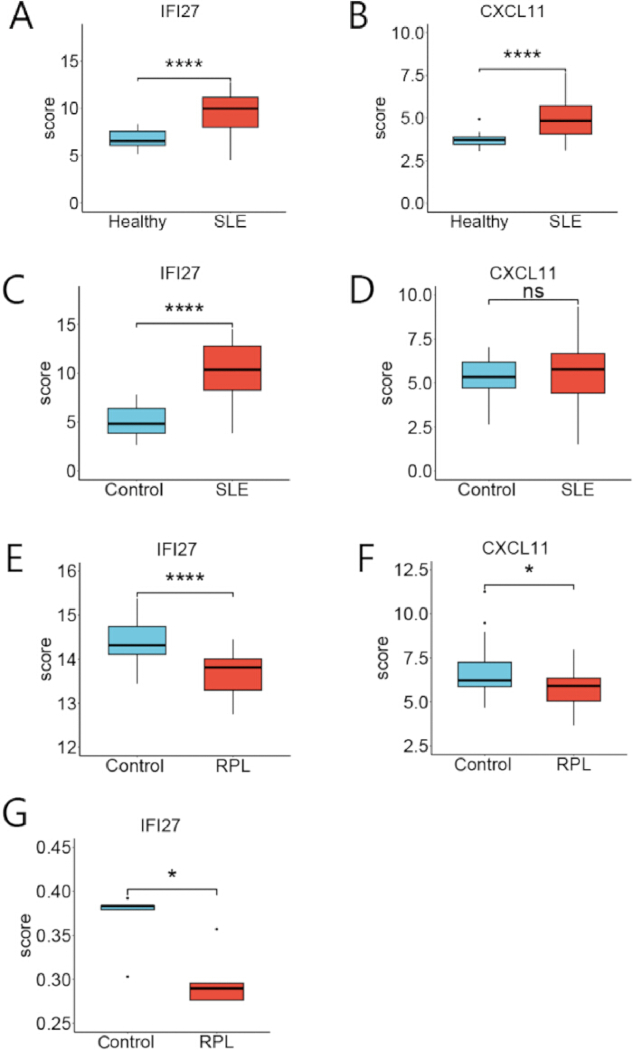
Şekil 6Keşif ve doğrulama veri setlerinde IFI27 ve CXCL11 ekspresyonu.
(A,B) Sistemik lupus eritematozus (SLE) keşif veri setinde (GSE61635) sırasıyla IFI27 ve CXCL11 ekspresyonu. (C,D) Bağımsız SLE doğrulama veri setinde (GSE50772) sırasıyla IFI27 ve CXCL11 ekspresyonu. (E,F) Tekrarlayan gebelik kaybı (RPL) keşif veri setinde (GSE165004) sırasıyla IFI27 ve CXCL11 ekspresyonu. (G) Bağımsız RPL doğrulama veri setinde (GSE198700) IFI27 ekspresyonu. Gen ekspresyonu, gruplar arasında iki yönlü Wilcoxon sıra toplamı testi kullanılarak karşılaştırılmıştır. P Aynı veri seti içinde birden fazla aday gen test edildiğinde, değerler Benjamini–Hochberg yöntemi kullanılarak düzeltilmiştir. P < 0.05; **** P < 0,0001; ns, anlamlı değil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Alıcı işletim karakteristiği (ROC) analizleri, pROC versiyon 1.18.5 (RRID:SCR_024286)38 kullanılarak gerçekleştirilmiştir. Her bir keşif veri setindeki her bir aday gen için ayrı ROC eğrileri oluşturulmuştur. ROC eğrisi altındaki alan (AUC) ve iki taraflı %95 güven aralığı, DeLong yöntemi kullanılarak hesaplanmıştır. Keşifsel tanısal kesim noktası, maksimum Youden indeksi kullanılarak belirlenmiştir. Kesim noktası, sensitivite ve spesifite için güven aralıkları, rastgele tohum değeri 123 olarak ayarlanmış 2.000 tabakalı bootstrap tekrarı kullanılarak hesaplanmıştır. AUC, eşikten bağımsız bir ayırt etme ölçütü olarak kullanılmıştır39. Veri setleri retrospektif olduğu ve farklı dokular, platformlar ve normalizasyon prosedürleri kullanılarak oluşturulduğu için, Youden kaynaklı kesim noktaları her bir veri seti içinde ayrı ayrı hesaplanmış ve keşifsel veri setine özgü eşikler olarak değerlendirilmiştir. Bunlar standart klinik kesim noktaları olarak kabul edilmemiş ve platformlar arasında doğrudan aktarılmamıştır. Harici ROC sonuçları, prospektif klinik doğrulamadan ziyade transkriptomik doğrulamayı temsil etmektedir. pROC, AUC'ler için DeLong güven aralıklarını ve coords() aracılığıyla Youden indeksi optimizasyonunu desteklerken, ROC koordinatları için güven aralıkları tabakalı bootstrap yeniden örnekleme kullanılarak tahmin edilebilir. SLE ve RPL keşif veri setlerindeki aday gen ayırt etme özetleri ve ROC eğrileri Şekil 7'de sunulmuştur.
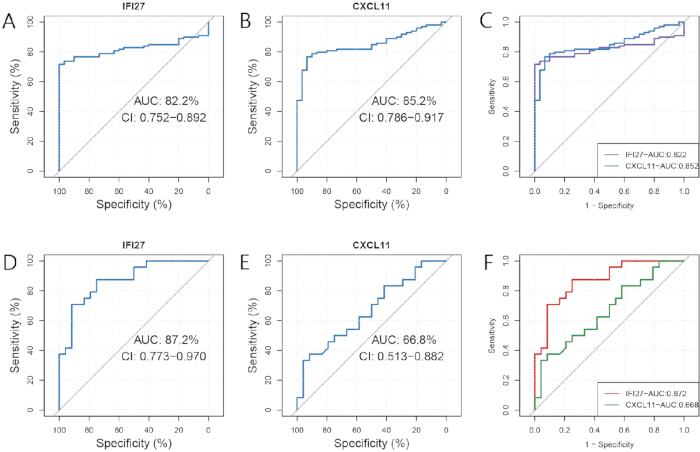
Şekil 7Aday genlerin alıcı işletim karakteristik analizi.
(A) Sistemik lupus eritematozus (SLE) keşif veri setinde IFI27 için alıcı işletim karakteristiği (ROC) eğrisi. (B) SLE keşif veri setinde CXCL11 için ROC eğrisi. (C) SLE keşif veri setinde IFI27 ve CXCL11'in tanısal performansının özeti. (D) Tekrarlayan düşük (RPL) keşif veri setinde IFI27 için ROC eğrisi. (E) RPL keşif veri setinde CXCL11 için ROC eğrisi. (F) RPL keşif veri setinde IFI27 ve CXCL11'in tanısal performansının özeti. Eğri altındaki alan (AUC) değerleri %95 güven aralıkları (GA) ile birlikte sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
ssGSEA immün infiltrasyon:
SLE ve RPL patogenezinde immün hücre disregülasyonunun rollerine dayanarak40,41, GSE61635 ve GSE165004 keşif veri setlerinde immün hücre zenginleşmesi hesaplamalı olarak çıkarılmıştır. Analiz, her veri seti içinde ayrı ayrı gerçekleştirilmiş ve veri setleri birleştirilmemiştir. İmmün hücre gen imzası koleksiyonu, Charoentong et al. tarafından tanımlanan 28 immün hücre popülasyonu için marker gen setlerinden oluşmuştur42. Orijinal ek gen imzası tablosu, resmi insan gen sembolleri kullanılarak isimlendirilmiş bir gen seti listesine dönüştürülmüştür. Her gen seti içindeki yinelenen semboller kaldırılmıştır. İlgili ekspresyon matrisinde bulunmayan genler atılmış ve tanımlayıcı eşleştirmesinden sonra beşten az eşleşmiş gen içeren gen setleri o veri setinden hariç tutulmuştur. Tek örnekli gen seti zenginleşme analizi (ssGSEA), GSVA versiyon 1.52.3 (RRID:SCR_021058) ve GSEABase versiyon 1.66.0 kullanılarak gerçekleştirilmiştir. GSVA versiyon 1.52.3'te, yönteme özgü bir parametre nesnesi gereklidir. Şu parametreler kullanılmıştır: minSize = 5, maxSize = 500, alpha = 0.25, normalize = TRUE ve checkNA = "yes.”
Alfa parametresi 0,25 olarak ayarlandı ve final ssGSEA skor normalizasyonu etkinleştirildi. Gen setleri, ekspresyon matrisi ile eşleştirildikten sonra 5–500 genle sınırlandırıldı. Sistemler arasında tutarlı hesaplama sağlamak için tek iş parçacıklı (single-threaded) yürütme kullanıldı. kcdf parametresi, GSVA versiyon 1.52.3'teki ssgseaParam() prosedürünün bir parametresi olmadığı için kullanılmadı. ssGSEA, deneysel olarak ölçülen immün hücre sayıları veya mutlak hücre fraksiyonları yerine, örnek düzeyinde göreceli gen seti zenginleştirme skorları üretir43. GSVA 1.52.3 iş akışı, yönteme özgü bir parametre nesnesi gerektirir ve ssGSEA parametreleri alfa, skor normalizasyonu ve gen seti boyut sınırlarını içerir.
Her bir immün hücre imzası için, ssGSEA skorları hastalık ve kontrol grupları arasında iki yönlü Wilcoxon sıra toplamı testi kullanılarak karşılaştırıldı. 28 hücre tipi karşılaştırmasına ait P değerleri, her bir veri seti içinde Benjamini–Hochberg yöntemi kullanılarak ayrı ayrı düzeltildi. Düzeltilmiş P değeri < 0,05 olan immün hücre imzaları, farklılaşmış şekilde zenginleşmiş olarak kabul edildi.
Her veri seti içinde, aday gen ifadesi ile her bir immün hücre imzasının ssGSEA skoru arasında Spearman sıra korelasyonları hesaplandı. Korelasyon P değerleri, ilgili veri setindeki tüm aday gen-immün hücre kombinasyonları genelinde Benjamini–Hochberg yöntemi kullanılarak düzeltildi. Korelasyonlar, düzeltilmiş P değeri < 0.05 olduğunda istatistiksel olarak anlamlı kabul edildi. Korelasyon matrisleri ggcorrplot sürüm 0.1.4.1 kullanılarak görselleştirildi ve grup karşılaştırma grafikleri ggplot2 sürüm 3.5.1 kullanılarak oluşturuldu.
Tüm istatistiksel testler için ham normalize edilmiş ssGSEA skorları kullanılmıştır. Isı haritaları ve yığınlanmış görselleştirmeler yalnızca tanımlayıcı sunum amacıyla kullanılmıştır. Skorlar, bağışıklık hücrelerinin doğrudan oranları olarak tanımlanmamış ve gözlemlenen ilişkiler, deneysel olarak kanıtlanmış hücre-gen etkileşimlerinden ziyade hesaplamalı korelasyonlar olarak yorumlanmıştır. Bağışıklık hücresi imza zenginleşme profilleri, grup karşılaştırmaları ve aday gen ekspresyonu ile olan korelasyonlar Şekil 8'de sunulmuştur.
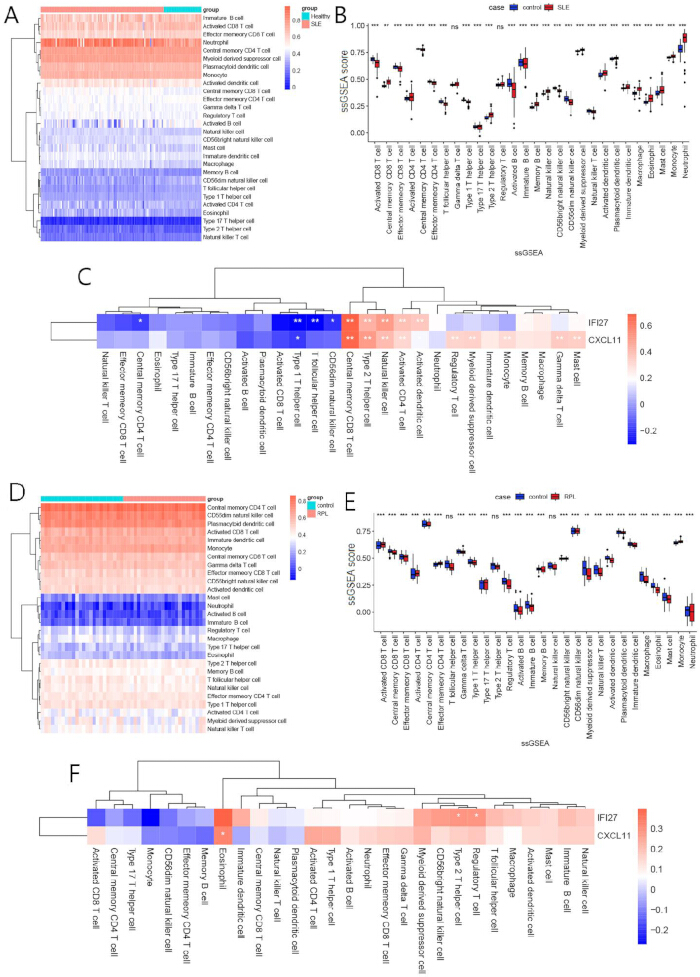
Şekil 8Sistemik lupus eritematozus ve tekrarlayan gebelik kaybında immün hücre imzası zenginleşmesi ve ortak aday genlerle korelasyonlar.
(A) Sistemik lupus eritematozus (SLE) keşif veri setindeki 28 immün hücre imzası için tek örnekli gen seti zenginleştirme analizi (ssGSEA) skorlarının hiyerarşik kümeleme ısı haritası. (B) SLE'li hastalar ile sağlıklı kontroller arasındaki immün hücre imzası ssGSEA skorlarının karşılaştırılması. (C) SLE keşif veri setinde IFI27 ve CXCL11 ekspresyonu ile 28 immün hücre imzası ssGSEA skoru arasındaki ilişkileri gösteren Spearman korelasyon ısı haritası. (D) Tekrarlayan gebelik kaybı (RPL) keşif veri setindeki 28 immün hücre imzası için ssGSEA skorlarının hiyerarşik kümeleme ısı haritası. (E) RPL'li hastalar ile fertil kontroller arasındaki immün hücre imzası ssGSEA skorlarının karşılaştırılması. (F) RPL keşif veri setinde IFI27 ve CXCL11 ekspresyonu ile 28 immün hücre imzası ssGSEA skoru arasındaki ilişkileri gösteren Spearman korelasyon ısı haritası. Korelasyonlar Spearman sıra korelasyonu kullanılarak hesaplanmış ve P değerler Benjamini–Hochberg yöntemi kullanılarak düzeltildi. P < 0.05; ** P < 0.01; *** P < 0,001; ns, anlamlı değil. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Sonuçlar
MR analizi
Enstrüman seçimi ve veri harmonizasyonunun ardından, SLE'nin maruziyet ve spontan düşük sayısının ise sonuç olarak ele alındığı ileri MR analizi için 16 SNP korunmuştur. Enstrümantal değişkenlere ilişkin ayrıntılı bilgiler Ek Tablo 1'de sunulmuştur. Korunan tüm SNP'lerin F istatistikleri 10'dan büyük olup, bu durum zayıf enstrüman yanlığı olasılığının düşük olduğunu göstermiştir. Korunan her bir SNP ayrıca PhenoScanner V2 kullanılarak taranmış ve aPL ile ilişkili herhangi bir SNP saptanmamıştır. MR-PRESSO analizi herhangi bir aykırı değer belirlememiştir. Cochran’s Q testi, SNP'ye özgü tahminler arasında anlamlı bir heterojenlik olmadığını göstermiştir (Q = 16.12, P = 0.31); bu nedenle, sabit etkili IVW modeli uygulanmıştır. MR-Egger kesişim testi, yönlü yatay pleiotropiye işaret etmemiştir (P = 0.69). IVW analizi, genetik olarak öngörülen SLE ile spontan düşük sayısı arasında istatistiksel olarak anlamlı ancak niceliksel olarak mütevazı pozitif bir ilişki olduğunu göstermiştir (olasılık oranı [OR] = 1.01, 95% güven aralığı [CI] = 1.00–1.02, P < 0.01; Şekil 2A). MR-Egger regresyonu (OR = 1.01, 95% CI = 1.00–1.03, P = 0.16), ağırlıklı medyan yöntemi (OR = 1.01, 95% CI = 1.00–1.02, P = 0.17) ve ağırlıklı mod yöntemi (OR = 1.01, 95% CI = 0.99–1.03, P = 0.42) ile elde edilen etki tahminleri, tek başlarına istatistiksel anlamlılığa ulaşmasalar da IVW tahmini ile yönsel olarak tutarlıdır. Birini çıkarma (leave-one-out) analizi, herhangi bir tek SNP'nin dışlanmasının havuzlanmış tahmini önemli ölçüde değiştirmediğini göstermiştir ve yaklaşık olarak simetrik olan huni grafiği, sonucun belirgin bir yönlü pleiotropiden kaynaklandığına dair görsel bir kanıt sunmamıştır. İlgili saçılım grafiği, SNP'ye özgü forest grafiği, birini çıkarma analizi ve huni grafiği Ek Şekil 1–4'te sunulmuştur.
Ters MR analizinde, instrument seçimi sonrası 16 SNP korunmuştur ve hepsinin F istatistikleri 10'dan büyüktür (Ek Tablo 2). MR-PRESSO analizi herhangi bir aykırı değer saptamamıştır. Cochran’ın Q testi anlamlı bir heterojenlik göstermemiştir (Q = 13.41, P = 0.50) ve MR-Egger kesişim testi yönlü yatay pleiotropi lehine bir kanıt sunmamıştır (P = 0.41). IVW tahmini, genetik olarak öngörülen spontan düşük sayısı ile SLE riski arasında bir ilişkiyi desteklememiştir (OR = 0.93, 95% CI = 0.21–4.23, P = 0.93; Şekil 2B). Birlikte değerlendirildiğinde, MR sonuçları genetik olarak öngörülen SLE'den spontan düşük sayısına doğru ileri yönde mütevazı bir ilişkiyi desteklerken, ters analiz genetik olarak öngörülen spontan düşük sayısından SLE riskine doğru bir ilişkiyi desteklememiştir.
Biyoinformatik analiz
Diferansiyel ekspresyon analizi:
GSE61635'in diferansiyel ekspresyon analizi, SLE ve sağlıklı kontrol grupları arasında, 678'i artmış (upregulated) ve 298'i azalmış (downregulated) genler olmak üzere 976 DEG belirlemiştir (Şekil 3C). GSE165004 analizi, RPL ve kontrol grupları arasında, 578'i artmış ve 671'i azalmış genler olmak üzere 1.249 DEG belirlemiştir (Şekil 3D). İki keşif veri setindeki en anlamlı 50 DEG'yi gösteren ısı haritaları Şekil 3A ve Şekil 3B'de sunulmuştur. Ek olarak, iki veri seti arasında paylaşılan 59 DEG belirlenmiştir (Şekil 3E). Bu ortak DEG'ler, sonraki fonksiyonel zenginleştirme ve ağ analizleri için kullanılan gen setini oluşturmuştur.
Kesişim DEG'lerinin fonksiyonel zenginleştirme analizi:
Ortak 59 DEG, DAVID kullanılarak GO ve KEGG yolak zenginleştirme analizlerine tabi tutulmuştur. Biyolojik süreç kategorisinde, ortak DEG'ler; virüse karşı savunma yanıtı, virüse yanıt, viral genom replikasyonunun negatif düzenlemesi, antiviral doğuştan gelen bağışıklık yanıtı, apoptotik sürecin negatif düzenlemesi ve hücre yapışması açısından zenginleşmiştir. Zenginleşen hücresel bileşen terimleri arasında hücre dışı bölge, endoplazmik retikulum membranı, aktin hücre iskeleti ve membran yer almıştır. Zenginleşen moleküler fonksiyon terimleri arasında kalsiyum iyonu bağlanması tespit edilmiştir. KEGG analizi, hepatit C ve influenza A ile ilgili yolaklarda zenginleşme göstermiştir (Şekil 4A). Bu bulgular, ortak DEG'lerin ağırlıklı olarak antiviral ve bağışıklıkla ilgili biyolojik süreçlerle ilişkili olduğunu göstermekte ve SLE ile RPL keşif veri setlerinde ortak olan genler için fonksiyonel bir bağlam sağlamaktadır.
PPI ağı ve hub genlerin belirlenmesi
Paylaşılan 59 DEG, 0,400 minimum etkileşim güven puanı kullanılarak bir PPI ağı oluşturmak üzere STRING'e yüklendi. Ortaya çıkan ağ 59 düğüm ve 80 kenar içeriyordu. Ağ, görselleştirme için Cytoscape versiyon 3.10.0'a aktarıldı ve topolojik analizden önce izole düğümler çıkarıldı (Şekil 4B). Hub-gen sıralaması cytoHubba eklentisi kullanılarak gerçekleştirildi. Altı algoritma uygulandı: Maximal Clique Centrality (MCC), Maximum Neighborhood Component (MNC), Edge Percolated Component (EPC), Degree, Closeness ve Radiality. Altı algoritmanın tamamı tarafından üretilen en üst sıralamadaki genler arasında aynı 10 gen belirlendi: RSAD2, RTP4, IFIT3, IFI27, IFI44, GBP1, MX1, OAS1, IFIT1 ve CXCL11 (Tablo 3). Bu nedenle, bu genler sonraki LASSO regresyonu için aday ağ hub'ları olarak saklandı.
LASSO regresyonu IFI27 ve CXCL11'i ortak aday genler olarak belirledi
10 aday merkez gen, SLE ve RPL keşif veri setlerinde LASSO regresyon analizine tabi tutuldu. SLE veri setinde, seçilen lambda değerinde dört gen sıfır olmayan katsayılar sergiledi: IFIT3, IFI27, IFI44 ve CXCL11; katsayıları sırasıyla 2.575, 0.057, 2.359 ve 0.307 idi (Şekil 5A,B). RPL veri setinde ise dört gen sıfır olmayan katsayılar sergiledi: IFI27, GBP1, OAS1 ve CXCL11; katsayıları sırasıyla −0.897, 0.167, −1.007 ve −0.519 idi (Şekil 5C,D). İki hastalığa özgü model tarafından seçilen genlerin karşılaştırılması sonucu, IFI27 ve CXCL11 ortak LASSO seçili aday genler olarak belirlendi. Bu iki gen daha sonra keşif ve harici doğrulama veri setlerinde değerlendirildi.
IFI27 ve CXCL11 ekspresyonunun dış doğrulaması
İki aday genin ekspresyon paternleri, GEO veri tabanından elde edilen bağımsız GSE50772 ve GSE198700 doğrulama veri setleri kullanılarak değerlendirildi. GSE61635'te, hem IFI27 hem de CXCL11, sağlıklı kontrollere kıyasla SLE grubunda anlamlı derecede yukarı regüle olmuştur (Şekil 6A,B). Bağımsız SLE doğrulama veri setinde (GSE50772), IFI27 anlamlı derecede yukarı regüle kalmaya devam ederken (Şekil 6C), CXCL11 gruplar arasında anlamlı bir farklılık göstermemiştir (Şekil 6D). RPL keşif veri setinde (GSE165004), hem IFI27 hem de CXCL11, kontrollere kıyasla RPL grubunda anlamlı derecede aşağı regüle olmuştur (Şekil 6E,F). Bağımsız RPL doğrulama veri setinde (GSE198700), IFI27 RPL grubunda anlamlı derecede aşağı regüle kalmaya devam ederken (Şekil 6G), CXCL11 tespit edilememiştir. Genel olarak, IFI27 hem SLE hem de RPL keşif ve doğrulama veri setleri genelinde tutarlı bir diferansiyel ekspresyon göstermiştir. Buna karşılık, CXCL11 dış doğrulama veri setlerinde tutarlı bir şekilde tekrarlanamamıştır. Buna göre, IFI27 sonraki analizler için ortak aday biyobelirteç olarak önceliklendirilmiştir.
Tanısal ayırt ediciliğin keşifsel değerlendirmesi
Analiz edilen retrospektif transkriptomik veri setlerinde IFI27 ve CXCL11 ekspresyonunun hastalık örneklerini kontrollerden ayırt etme yeteneğini değerlendirmek için alıcı işletim karakteristiği (ROC) analizi gerçekleştirilmiştir. SLE için IFI27, 0,822'lik bir ROC eğrisi altında kalan alan (AUC) değeri verirken (95% CI = 0,752–0,892; Şekil 7A), CXCL11 0,852'lik bir AUC değeri vermiştir (95% CI = 0,786–0,917; Şekil 7B). SLE veri setindeki iki aday gen için ROC eğrilerinin karşılaştırması Şekil 7C'de gösterilmiştir. RPL için IFI27 0,872'lik bir AUC değeri verirken (95% CI = 0,773–0,970; Şekil 7D), CXCL11 0,668'lik bir AUC değeri vermiştir (95% CI = 0,513–0,882; Şekil 7E). RPL veri setindeki iki aday gen için ROC eğrilerinin karşılaştırması Şekil 7F'de gösterilmiştir. IFI27, her iki hastalık veri setinde de 0,80'den büyük AUC değerleri sergilemiş ve ekspresyon veri setleri genelinde CXCL11'den daha tutarlı bir dış doğrulama göstermiştir. Bu bulgular, IFI27'nin daha ileri değerlendirmeler için bir aday biyobelirteç olduğu görüşünü desteklemektedir. Bununla birlikte, ROC analizleri retrospektif halka açık transkriptomik veri setleri kullanılarak gerçekleştirildiğinden, sonuçlar prospektif klinik tanısal doğrulama yerine transkriptomik ayırt ediciliğin keşifsel kanıtları olarak yorumlanmalıdır.
İmmün infiltrasyonun hesaplamalı değerlendirmesi
GSE61635 ve GSE165004 keşif veri setlerinde 28 immün hücre imzasının zenginleşmesini değerlendirmek için ssGSEA gerçekleştirilmiştir. SLE ve RPL veri setleri için immün hücre zenginleşme ısı haritaları sırasıyla Şekil 8A,D'de gösterilmiş, ssGSEA skorlarının ilgili grup karşılaştırmaları ise Şekil 8B,E'de sunulmuştur. SLE veri setinde; CD8+ T hücreleri, CD4+ T hücreleri, B hücreleri, dendritik hücreler, tip 1 yardımcı T (Th1) hücreleri, tip 2 yardımcı T (Th2) hücreleri, tip 17 yardımcı T (Th17) hücreleri, doğal öldürücü hücreler, makrofajlar, eozinofiller, mast hücreleri, monositler ve nötrofilleri temsil edenler dahil olmak üzere birden fazla immün hücre imzası, SLE hastaları ile sağlıklı kontroller arasında anlamlı farklılık göstermiştir (Şekil 8B). RPL veri setinde; aktive olmuş CD8+ T hücreleri, aktive olmuş CD4+ T hücreleri, efektör bellek CD4+ T hücreleri, Th17 hücreleri ve monositler için ssGSEA skorları RPL grubunda kontrol grubuna göre daha yüksek bulunmuştur. Buna karşın, düzenleyici T hücreleri (Treg) ve makrofajlar için ssGSEA skorları RPL grubunda kontrol grubuna göre daha düşüktür (Şekil 8E). Korelasyon analizi, SLE veri setinde IFI27 ve CXCL11 ekspresyonunun aktive olmuş CD4+ T hücreleri, doğal öldürücü hücreler, Th2 hücreleri ve merkezi bellek CD8+ T hücrelerinin ssGSEA skorları ile pozitif korelasyon gösterdiğini ve Th1 hücresi ssGSEA skoru ile negatif korelasyon gösterdiğini ortaya koymuştur (Şekil 8C). RPL veri setinde, IFI27 ekspresyonu Treg ve Th2 hücrelerinin ssGSEA skorları ile pozitif korelasyon gösterirken, CXCL11 ekspresyonu eozinofil ssGSEA skoru ile pozitif korelasyon göstermiştir (Şekil 8F).
Veri Kullanılabilirliği:
Bu çalışmada yeni bir birincil insan katılımcı verisi üretilmemiştir. Tüm analizler, yalnızca halka açık genom çapında ilişkilendirme çalışması (GWAS) özet istatistiklerine ve transkriptomik veri setlerine dayanmaktadır. SLE GWAS özet istatistikleri FinnGen Release 11'den (erişim numarası: finngen_R11_L12_LUPUS) alınmıştır. Spontan düşük sayısına ilişkin özet istatistikler, UK Biobank verilerine dayanan IEU OpenGWAS kaynağından (erişim numarası: ukb-b-419) elde edilmiştir. Transkriptomik veri setleri, Ulusal Biyoteknoloji Bilgi Merkezi Gene Expression Omnibus (GEO) üzerinden GSE61635, GSE165004, GSE50772 ve GSE198700 erişim numaralarıyla temin edilmiştir. Halka açık veri setlerine aşağıdaki depolardan erişilebilir:
-- FinnGen Sürüm 11: https://r11.finngen.fi/
-- IEU OpenGWAS: https://gwas.mrcieu.ac.uk/
-- Gene Expression Omnibus (GEO): https://www.ncbi.nlm.nih.gov/geo/
Bu çalışmanın bulgularını destekleyen işlenmiş veriler, makalede ve Ek Materyallerinde yer almaktadır. Birey düzeyinde veya kişisel olarak tanımlanabilir katılımcı verilerine erişilmemiş ve bu veriler saklanmamıştır. Analitik iş akışı, Protokolde açıklandığı şekilde halka açık yazılımlar ve paketler kullanılarak gerçekleştirilmiştir.
Ek Dosya 1. Tamamlanmış STROBE-MR raporlama kontrol listesi.
Her bir önerilen raporlama öğesinin makalede nerede ele alındığını belirten tamamlanmış Strengthening the Reporting of Observational Studies in Epidemiology Using Mendelian Randomization (STROBE-MR) kontrol listesi. Bu dosyayı indirmek için lütfen buraya tıklayınız.
Ek Şekil 1. İleri yönlü Mendelyen randomizasyon analizinin dağılım grafiği.
Enstrümantal tek nükleotid polimorfizmlerinin (SNP'ler) sistemik lupus eritematosus (SLE) üzerindeki genetik etkileri ile spontane düşük sayısı arasındaki ilişkileri gösteren dağılım grafiği. Her nokta bir SNP'yi temsil etmekte olup, yatay ve dikey hata çubukları SNP etki tahminlerinin standart hatalarını göstermektedir. Regresyon çizgeleri sırasıyla ters varyans ağırlıklı, MR-Egger, ağırlıklı medyan ve ağırlıklı mod Mendelyen randomizasyon yöntemlerine karşılık gelmektedir. Lütfen bu dosyayı indirmek için buraya tıklayınız.
Ek Şekil 2. İleri Mendelyen randomizasyon analizinden elde edilen tek nükleotid polimorfizmiye özgü nedensel tahminler.
Sistemik lupus eritematözü (SLE) ile spontan düşük sayısı arasındaki ilişki üzerinde, her bir araçsal tek nükleotid polimorfizminin (SNP) nedensel etki tahminini gösteren orman grafiği (forest plot). Siyah noktalar, %95 güven aralıklarıyla birlikte SNP'ye özgü etki tahminlerini temsil eder. Kırmızı noktalar, ters varyans ağırlıklı ve MR-Egger yöntemleri kullanılarak elde edilen genel nedensel etki tahminlerini temsil eder. Dikey kesikli çizgi, etkisiz (null) durumu belirtir. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Şekil 3. İleri yönlü Mendelyen randomizasyon analizinin birini dışarıda bırakma (leave-one-out) duyarlılık analizi.
Sistemik lupus eritematozus (SLE) ile spontan düşük sayısı arasındaki ilişkiyi değerlendiren birini dışarıda bırakma duyarlılık analizinin sonuçlarını gösteren forest plot. Her bir siyah nokta, bir instrumental tek nükleotid polimorfizminin (SNP) ardışık olarak hariç tutulmasından sonraki genel ters-varyans ağırlıklı nedensel etki tahminini temsil etmekte olup, yatay çizgiler ilgili %95 güven aralıklarını göstermektedir. Kırmızı nokta, tüm instrumental SNP'ler kullanılarak elde edilen genel ters-varyans ağırlıklı tahmini temsil etmektedir. Dikey kesikli çizgi, etkisizliği (null effect) belirtmektedir. Lütfen bu dosyayı indirmek için buraya tıklayınız.
Ek Şekil 4. İleri yönlü Mendelian randomizasyon analizinin huni grafiği.
Sistemik lupus eritematözus (SLE) ile spontan düşük sayısı arasındaki ilişki için SNP'ye özgü nedensel etki tahminlerinin dağılımını gösteren huni grafiği. Her bir nokta bir instrumental tek nükleotid polimorfizmini (SNP) temsil eder. Dikey çizgiler, ters varyans ağırlıklı ve MR-Egger yöntemleri kullanılarak elde edilen genel nedensel etki tahminlerini göstermektedir. y-ekseni, standart hatanın tersini (1/SE) temsil eder. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 1. İleri yönlü Mendelyen randomizasyon analizi için seçilen instrumental tek nükleotid polimorfizmleri.
Tablo, sistemik lupus eritematozusu ve spontan düşük sayısı için yapılan ileri yönlü Mendelyen randomizasyon analizinde kullanılan instrumental tek nükleotid polimorfizmlerini (SNP'ler); en yakın açıklanan gen, kromozom, genomik konum, etki aleli, etki aleli frekansı, etki büyüklüğü (Beta), standart hata (SE), P değeri ve F istatistiği ile birlikte listelemektedir. Kromozomal konumlar, genom çapında ilişkilendirme çalışmasında kullanılan kaynak genom dizilimine dayanmaktadır. F istatistiği Beta2/SE2 olarak hesaplanmıştır. Lütfen bu dosyayı indirmek için buraya tıklayınız.
Ek Tablo 2. Ters Mendelyen randomizasyon analizi için seçilen instrumental tek nükleotid polimorfizmleri.
Tablo, maruziyet olarak spontan düşük sayısı ve sonuç olarak sistemik lupus eritematozusun kullanıldığı ters Mendelyen randomizasyon analizi için kullanılan instrumental tek nükleotid polimorfizmlerini (SNP'ler); en yakın açıklanan geni, kromozomu, genomik pozisyonu, etki alelini, etki aleli frekansını, etki büyüklüğünü (Beta), standart hatayı (SE), P değerini ve F istatistiğini içerecek şekilde listelemektedir. Kromozomal pozisyonlar, genom çapındaki ilişkilendirme çalışmasında kullanılan kaynak genom dizilimine dayanmaktadır. F istatistiği Beta2/SE2 olarak hesaplanmıştır. Lütfen bu dosyayı indirmek için buraya tıklayın.
Tartışma
Çok boyutlu biyoinformatik analizlerle birleştirilmiş çift yönlü MR analizi aracılığıyla, bu çalışma, ortak transkriptomik biyobelirteçleri sistematik olarak tararken SLE ile RPL arasında pozitif bir nedensel ilişki belirlemiştir. Bildiğimiz kadarıyla bu, söz konusu ilişkiyi araştırmak için çift yönlü MR, transkriptomik analizler ve immün infiltrasyon analizlerini entegre eden ilk çalışmadır. Gözlemlenen MR etki büyüklüğü mütevazı olsa da (IVW OR = 1.01), ilişki; önemli heterojenlik, yatay pleiotropi veya etkili aykırı değer kanıtı olmaksızın, birden fazla tamamlayıcı MR yöntemi ve hassasiyet analizi tarafından tutarlı bir şekilde desteklenmiştir; bu durum, gözlemlenen ilişkinin istatistiksel olarak sağlam ancak niceliksel olarak küçük olduğunu göstermektedir. Bu nedenle, mevcut bulgular büyük bir klinik etkiden ziyade, SLE'nin RPL duyarlılığına mütevazı bir genetik katkısı olduğunu destekleyen kanıtlar olarak yorumlanmalıdır. Nedensel çıkarımı transkriptomik doğrulama ve immün infiltrasyon analizleriyle entegre eden bu çalışma, kompleks immün aracılı reprodüktif bozukluklar için aday biyobelirteçlerin önceliklendirilmesine yönelik tekrarlanabilir bir çerçeve sunmaktadır. Mısır'da 2007 ile 2021 yılları arasında gerçekleştirilen ve SLE'li 123 kadını ve toplam 201 gebeliği kapsayan bir çalışma, SLE'li kadınlardaki gebeliklerin %20,4'ünün fötal kayıpla sonuçlandığını bildirmiştir44. Önceki çalışmalar da benzer şekilde, immün düzensizliğin gebelik kaybı olasılığını artırabilmesi nedeniyle SLE'nin RPL için önemli bir risk faktörü olduğunu öne sürmüştür12.
Biyoenformatik analizler, paylaşılan 59 diferansiyel olarak eksprese edilen genin (DEG'ler) öncelikle antiviral immün yanıtlar, hücre adhezyonu ve apoptozun düzenlenmesi ile ilgili yolaklarda zenginleştiğini ortaya koymuştur. Viral enfeksiyonlar, SLE patogenezine katkıda bulunabilir. SLE'li hastalar genellikle hem doğal hem de adaptif immün yanıtlarda disfonksiyon sergilerler45,46, bu da onları viral enfeksiyonlara karşı daha savunmasız hale getirir. Bu artmış yatkınlık, plasental inflamasyon ve plasental hücre hasarı gibi mekanizmalar aracılığıyla gebelik kaybına katkıda bulunabilir47. Plasentanın temel bir bileşeni olan trofoblast hücrelerinin otofajisindeki ve biyolojik davranışındaki değişiklikler de RPL gelişimi ile ilişkilendirilmiştir48,49. Birlikte değerlendirildiğinde, bu gözlemler SLE ile ilişkili immün disregülasyonun, trofoblast hücresi fonksiyonlarını etkileyerek gebelik sonuçlarını etkileyebileceğini düşündürmektedir. Daha ileri analizler, IFI27 ve CXCL11'i SLE ve RPL tarafından paylaşılan aday hub genler olarak tanımlamıştır. Ancak, bağımsız veri setleri genelinde daha yüksek biyolojik tutarlılık göstermesi nedeniyle sonraki analizler için IFI27'ye öncelik verilmiştir. Her iki gen de LASSO modeli tarafından seçilmiş olsa da, yalnızca IFI27 hem keşif hem de dış doğrulama veri setlerinde tutarlı diferansiyel ekspresyon göstermiş, CXCL11 ise doğrulama veri setlerinde tutarlı şekilde tekrarlanmamıştır. Ayrıca, IFI27 RPL için daha güçlü bir diyagnostik ayrım göstermiş ve kan ile üreme dokusu veri setleri genelinde anlamlı şekilde disregüle kalmaya devam etmiştir. Topluca, bu bulgular, ek deneysel doğrulama gereksinimine rağmen, IFI27'nin CXCL11'den daha sağlam bir aday biyobelirteç olduğunu desteklemektedir. GSE50772 SLE veri seti ve GSE198700 RPL veri seti kullanılarak yapılan doğrulama, IFI27 ekspresyonunun doğrulama veri setleri genelinde tutarlı bir şekilde disregüle kaldığını göstermiştir. Özellikle, önceki çalışmalarla uyumlu olarak IFI27, SLE'li hastaların kan örneklerinde aşırı eksprese edilmiş50, ancak RPL'li hastaların endometrial ve koryonik villus örneklerinde downregüle olmuştur. Bu karşıt örüntü, RPL ile komplike olmuş SLE'de sistemik immün disregülasyon ile maternal-fetal ara yüzdeki lokal immün ortam arasındaki farkları yansıtıyor olabilir.
IFI27; antiviral immünite, interferon sinyali ve viral enfeksiyon sonrası konak immün yanıtlarında rol oynayan interferon-stimüle bir gendir51,52. Normal gebelikte IFI27 ekspresyonu trofoblast hücrelerinde belirgin şekilde artmıştır53, bu da trofoblast fonksiyonunun sürdürülmesinde önemli bir fizyolojik role işaret etmektedir. Buna karşılık, analizlerimiz tekrarlayan düşük (RPL) olan hastaların endometriyumunda ve koryonik villuslarında azalmış IFI27 ekspresyonu göstermiştir. Bu bulgu önceki bazı raporlardan farklılık gösterse de54, mevcut çalışmanın eşleştirilmiş maternal-fetal örnekler yerine farklı dokulardan elde edilen transkriptomik veri setlerini entegre etmesi nedeniyle dikkatle yorumlanmalıdır. Olası bir açıklama, SLE'deki kronik sistemik tip I interferon aktivasyonunun, dolaşımdaki immün hücrelerde sürekli interferon sinyalini tetiklerken aynı zamanda maternal-fetal arayüzde reseptör desensitizasyonunu, immün tükenmişliği veya kompanse edici negatif geri bildirim mekanizmalarını teşvik etmesidir. Alternatif olarak, dokuya özgü epigenetik düzenleme veya periferik kan ile reprodüktif dokular arasındaki hücresel kompozisyon farklılıkları, sistemik interferon aktivasyonuna rağmen lokal IFI27 ekspresyonunu baskılayabilir. Bu hipotezler spekülatif kalmaktadır ve dokuya özgü ile hücre tipine özgü düzenleyici mekanizmaları ayırt edebilmek için, ideal olarak tek hücre düzeyinde, eşleştirilmiş maternal kan, endometrial doku ve trofoblast örnekleri kullanılarak mekanistik olarak doğrulanması gerekmektedir55.
İmmün infiltrasyon analizi, hem SLE hem de RPL'de, öncelikle CD4+ T hücresi ile ilişkili popülasyonlardaki değişikliklerle karakterize olan immün hücre imzalarında anlamlı farklılıklar olduğunu göstermiştir. IFI27 ekspresyonu, her iki hastalıkta da Th2 hücresi zenginleşmesiyle pozitif korelasyon göstermiştir; ancak bu bulgular, deneysel olarak doğrulanmış biyolojik etkileşimlerden ziyade ssGSEA'dan türetilen hesaplamalı korelasyonları temsil etmektedir. Önceki çalışmalar, SLE hastalarının periferik kanının, bulgularımızla tutarlı olarak, azalmış oranlarda Th1 ve Treg hücreleri ancak artmış oranlarda Th2 hücreleri içerdiğini göstermiştir56,57. Normal gebelik sırasında, maternal-fetal arayüzdeki Th1/Th2 immün dengesi Th2-dominant bir duruma kayar58. Bu nedenle, reprodüktif dokulardaki azalmış IFI27 ekspresyonu, bozulmuş maternal-fetal tolerans ile ilişkili lokal immün homeostazdaki değişiklikleri yansıtıyor olabilir; ancak IFI27'nin bu süreci doğrudan düzenleyip düzenlemediği deneysel olarak belirlenmelidir.
Birkaç kısıtlamanın kabul edilmesi gerekmektedir. İlk olarak, MR analizleri nedensel bir ilişkiyi desteklemiş olsa da, tahmin edilen genetik etki nispeten küçüktür; bu durum, SLE'nin RPL'nin multifaktöriyel patogenezinin yalnızca bir bileşenini temsil ettiğini göstermektedir. İkinci olarak, transkriptomik entegrasyon; farklı dokulardan (periferik kan, endometriyum ve koryonik villus), mikroarray platformlarından ve bağımsız kohortlardan elde edilen veri setlerini içermekte olup, bu durum IFI27'nin tutarlı validasyonuna rağmen biyolojik ve teknik heterojeniteye yol açmış olabilir. Üçüncü olarak, koryonik villuslar için kullanılan harici validasyon kohortu sınırlı sayıda örnek içermekteydi, bu da istatistiksel gücü ve genellenebilirliği azaltmış olabilir. Dördüncü olarak, halka açık veri setleri sınırlı klinik bilgiler içerdiğinden; hastalık aktivitesi, antifosfolipid antikor durumu, ilaç maruziyeti, gebelik evresi ve diğer klinik kovaryantlar dahil olmak üzere önemli faktörler tam olarak değerlendirilememiştir. Son olarak, PhenoScanner taraması MR analizlerindeki potansiyel pleiotropik karıştırıcı etkileri minimize etmiş olsa da, kalıntı karıştırıcı etkiler tamamen dışlanamaz.
Translasyonel bir perspektiften bakıldığında, IFI27 şu an için klinik olarak valide edilmiş bir tanısal belirteçten ziyade aday bir biyobelirteç olarak değerlendirilmelidir. Klinik uygulamadan önce, farklı popülasyonlarda tanısal performansını doğrulamak, standardize edilmiş analiz platformları ve tanısal eşik değerler belirlemek ve gebelik evresi, hastalık aktivitesi ile immünosupresif tedavinin IFI27 ekspresyonunu nasıl etkilediğini saptamak için prospektif çok merkezli çalışmalara ihtiyaç vardır. Fonksiyonel deneylerin yanı sıra, spatial transkriptomik ve tek hücreli transkriptomik analizler, IFI27'nin maternal-fetal immün regülasyona aktif olarak katkıda mı bulunduğu yoksa sadece interferon kaynaklı immün aktivasyonu mu yansıttığını netleştirmek için temel önem taşıyacaktır.
Açıklamalar
Çıkar Çatışması:
Yazarlar, herhangi bir rakip finansal veya finansal olmayan çıkarı olmadığını beyan ederler.
Teşekkürler
Bu çalışma, Beijing Municipal Administration of Traditional Chinese Medicine Major Difficult Diseases Integration of Traditional Chinese and Western Medicine Key Project (2023BJSZDYNJBXTGG-003), National-Level Public Welfare Scientific Research Fund for Basic Research Business of Institutes (ZZ16-XRZ-038) ve High-Level Chinese Medical Hospital Promotion Project (HLCMHPP2023087) tarafından desteklenmiştir. Fon sağlayan kurumların çalışma tasarımında, veri toplama, veri analizi, veri yorumlama, taslak hazırlama veya taslağın yayınlanmak üzere gönderilmesi kararında herhangi bir rolü olmamıştır. Yazarlar, veri setlerini kamuya açık hale getirdikleri için FinnGen çalışması araştırmacılarına ve katılımcılarına, UK Biobank'e ve National Center for Biotechnology Information Gene Expression Omnibus (GEO)'ya teşekkür ederler. Yazarlar ayrıca, Finlandiyalı araştırma kuruluşları, biyobankalar ve uluslararası ortaklar arasındaki iş birlikleri aracılığıyla Finlandiya biyobanka örneklerini ülke genelindeki sağlık kayıt verileriyle entegre eden FinnGen konsorsiyumuna teşekkürlerini sunarlar.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 28 bağışıklık hücresi gen imzası koleksiyonu | Yayımlanmış tamamlayıcı gen imzası kaynağı | Charoentong ve ark. (Referans 42) tarafından tanımlanan ek bağışıklık hücresi marker-gen listesi | Uygulanamaz RRID: Mevcut değil Amaç / notlar: ssGSEA için kullanılan immün hücre imzaları. |
| CNSknowall | CNSknowall web platformu | DAVID çıktı dosyaları | Uygulanamaz RRID: Kullanılamıyor Amaç / notlar: Filtrelenmiş fonksiyonel zenginleştirme sonuçlarının görselleştirilmesi. |
| Bilgisayar iş istasyonu | Kurumsal bilişim ortamı | Uygulanamaz | Uygulanamaz RRID: Uygulanamaz Amaç / notlar: Hesaplamalı analizler. |
| Sarf Malzemeleri | Uygulanamaz | Uygulanamaz | Uygulanamaz RRID: Uygulanamaz Amaç / notlar: Herhangi bir ıslak laboratuvar sarf malzemesi kullanılmamıştır. |
| Cytoscape | Cytoscape Konsorsiyumu | Uygulanamaz | 3.10.0 RRID: SCR_003032 Amaç / notlar: Protein–protein etkileşim ağı görselleştirme ve topoloji analizi. |
| cytoHubba | Cytoscape Uygulama Mağazası | Uygulanamaz | 0.1 RRID: SCR_017677 Amaç / notlar: MCC, MNC, EPC, Derece, Yakınlık ve Radyalite kullanılarak hub-gen sıralaması. |
| DAVID Fonksiyonel Anotasyon Aracı | Ulusal Sağlık Enstitüleri / Ulusal Kanser Enstitüsü | Yüklenen paylaşımlı DEG ve arka plan gen listeleri | 2021 RRID: SCR_001881 Amaç / notlar: Gen Ontolojisi ve KEGG yolak zenginleştirme analizi. |
| Avrupa LD referans paneli | 1000 Genomes Projesi / IEU OpenGWAS | Faz 3 Avrupa paneli (GRCh37 ile uyumlu varyantlar) | Faz 3 RRID: Rapor edilmedi Amaç / notlar: OpenGWAS/TwoSampleMR iş akışı aracılığıyla bağlantı dengesizliği kümelemesi. |
| FinnGen | FinnGen Konsorsiyumu | finngen_R11_L12_LUPUS | Sürüm 11 RRID: SCR_022254 Amaç / notlar: Lupus eritematozus için GWAS özet istatistikleri. |
| forestploter | CRAN | Uygulanamaz | 1.1.2 RRID: Mevcut değil Amaç / notlar: Mendelian randomizasyon tahminlerinin forest plot görselleştirmesi. |
| Gen İfade Omnibusu (GEO) | Ulusal Biyoteknoloji Bilgi Merkezi | GSE61635; GSE165004; GSE50772; GSE198700 | Uygulanamaz RRID: SCR_005012 Amaç / notlar: Keşif ve doğrulama transkriptomik veri setlerinin kaynağı. |
| Gen Ontolojisi | Gen Ontolojisi Konsorsiyumu | DAVID aracılığıyla erişilen GO terimleri | DAVID 2021 açıklamaları RRID: SCR_002811 Amaç / notlar: Biyolojik süreç, hücresel bileşen ve moleküler fonksiyon anotasyonu. |
| ggcorrplot | CRAN | Uygulanamaz | 0.1.4.1 RRID: Mevcut değil Amaç / notlar: Aday genin görselleştirilmesi–immün hücre korelasyon matrisleri. |
| ggplot2 | CRAN | Uygulanamaz | 3.5.1 RRID: SCR_014601 Amaç / notlar: Volkan grafikleri, kutu grafikleri ve diğer istatistiksel grafikler. |
| ggvenn | CRAN | Uygulanamaz | 0.1.16 RRID: SCR_025300 Amaç / notlar: Ortak diferansiyel eksprese edilen genlerin görselleştirilmesi. |
| glmnet | CRAN | Uygulanamaz | 4.1-8 RRID: SCR_015505 Amaç / notlar: LASSO lojistik regresyon ve çapraz doğrulama. |
| GSE165004 | NCBI GEO | GSE165004 / GPL16699 | İşlenmiş Seri Matrisi RRID: SCR_005012 Amaç / notlar: RPL endometrial keşif veri seti. |
| GSE198700 | NCBI GEO | GSE198700 / GPL13534 | İşlenmiş Seri Matrisi RRID: SCR_005012 Amaç / notlar: Bağımsız RPL koriyonik villus doğrulama veri seti. |
| GSE50772 | NCBI GEO | GSE50772 / GPL570 | İşlenmiş Seri Matrisi RRID: SCR_005012 Amaç / notlar: Bağımsız SLE periferik kan mononükleer hücresi doğrulama veri seti. |
| GSE61635 | NCBI GEO | GSE61635 / GPL570 | İşlenmiş Seri Matrisi RRID: SCR_005012 Amaç / notlar: SLE tam kan keşif veri seti. |
| GSEABase | Bioconductor | Uygulanamaz | 1.66.0 RRID: Mevcut değil Amaç / notlar: ssGSEA için immün hücre gen setlerinin yönetimi. |
| GSVA | Bioconductor | Uygulanamaz | 1.52.3 RRID: SCR_021058 Amaç / notlar: Tek örneklik gen seti zenginleştirme analizi (ssGSEA). |
| IEU OpenGWAS | MRC Entegre Epidemiyoloji Birimi | ukb-b-419; finngen_R11_L12_LUPUS | Uygulanamaz RRID: Rapor edilmedi Amaç / notlar: GWAS özet istatistiklerinin ve harmonize edilmiş genetik ilişkilendirme verilerinin elde edilmesi. |
| Kyoto Gen ve Genom Ansiklopedisi (KEGG) | Kanehisa Laboratuvarları | DAVID üzerinden erişilen KEGG yolakları | DAVID 2021 açıklamaları RRID: SCR_012773 Amaç / notlar: Yolak zenginleştirme anotasyonu. |
| limma | Bioconductor | Uygulanamaz | 3.60.6 RRID: SCR_010943 Amaç / notlar: Diferansiyel ekspresyon analizi. |
| MRPRESSO | Verbanck ve ark. | Uygulanamaz | 1 RRID: SCR_023697 Amaç / notlar: Yatay pleiotropinin ve aykırı instrumental değişkenlerin tespiti. |
| pheatmap | CRAN | Uygulanamaz | 1.0.12 RRID: SCR_016418 Amaç / notlar: Ekspresyon ısı haritaları. |
| PhenoScanner V2 | PhenoScanner Konsorsiyumu | SNP düzeyinde fenotip sorguları | Sürüm 2 RRID: Mevcut değil Amaç / notlar: Kalıcı SNP'lerin potansiyel karıştırıcı fenotip ilişkileri açısından taranması. |
| pROC | CRAN | Uygulanamaz | 1.18.5 RRID: SCR_024286 Amaç / notlar: ROC eğrileri, AUC'ler, DeLong güven aralıkları, Youden indeksi kesme değerleri ve bootstrap güven aralıkları. |
| R | R Foundation for Statistical Computing | Uygulanamaz | 4.4.2 RRID: SCR_001905 Amaç / notlar: İstatistiksel hesaplama ortamı. |
| Reaktifler | Uygulanamaz | Uygulanamaz | Uygulanamaz RRID: Uygulanamaz Amaç / notlar: Herhangi bir ıslak laboratuvar reaktifi kullanılmamıştır. |
| Lütfen çevirilecek kaynak metni sağlayın. | STRING Konsorsiyumu | Homo sapiens (takson 9606); minimum etkileşim skoru 0,400 | 11 RRID: SCR_005223 Amaç / notlar: Protein–protein etkileşim ağı oluşturma. |
| TwoSampleMR | MRC Entegre Epidemiyoloji Birimi | Uygulanamaz | 0.6.6 RRID: SCR_019010 Amaç / notlar: Çift yönlü iki örneklemli Mendelyen randomizasyonu, veri çıkarma, harmonizasyon, nedensellik tahmini ve duyarlılık analizleri. |
| UK Biobank | UK Biobank | ukb-b-419 | 2018 özet veri seti RRID: SCR_012815 Amaç / notlar: Spontan düşük sayısına ilişkin GWAS özet istatistikleri. |
Kaynaklar
- Petri M. Pregnancy and systemic lupus erythematosus. Best Pract Res Clin Obstet Gynaecol. 2020;64:24-30.
- Zhao X, et al. Advances in drug therapy for systemic lupus erythematosus. Curr Med Chem. 2021;28(7):1251-1268.
- Stanescu II, et al. Salivary biomarkers of inflammation in systemic lupus erythematosus. Ann Anat. 2018;219:89-93.
- Tian J, Zhang D, Yao X, Huang Y, Lu Q. Global epidemiology of systemic lupus erythematosus: A comprehensive systematic analysis and modelling study. Ann Rheum Dis. 2023;82(3):351-356.
- Palma Dos Reis CR, et al. Prediction of adverse pregnancy outcomes in women with systemic lupus erythematosus. Clin Rev Allergy Immunol. 2020;59(2):287-294.
- Venne K, Scott S, Bernatsky S, Vinet E. Induced abortions in women with systemic lupus erythematosus. Lupus. 2021;30(4):484-488.
- Kim JW, et al. Lupus low disease activity state achievement is important for reducing adverse outcomes in pregnant patients with systemic lupus erythematosus. J Rheumatol. 2021;48(5):707-716.
- Braga A, et al. Systemic lupus erythematosus and pregnancy: A Portuguese case-control study. Clin Rev Allergy Immunol. 2022;62(2):324-332.
- Dimitriadis E, Menkhorst E, Saito S, Kutteh WH, Brosens JJ. Recurrent pregnancy loss. Nat Rev Dis Primers. 2020;6(1):98.
- Quenby S, et al. Miscarriage matters: The epidemiological, physical, psychological, and economic costs of early pregnancy loss. Lancet. 2021;397(10285):1658-1667.
- Valeff NJ, Ventimiglia MS, Diao L, Jensen F. Lupus and recurrent pregnancy loss: The role of female sex hormones and B cells. Front Endocrinol (Lausanne). 2023;14:1233883.
- Gao R, Zeng X, Qin L. Systemic autoimmune diseases and recurrent pregnancy loss: Research progress in diagnosis and treatment. Chin Med J (Engl). 2021;134(17):2140-2142.
- Pantham P, Abrahams VM, Chamley LW. The role of anti-phospholipid antibodies in autoimmune reproductive failure. Reproduction. 2016;151(5):R79-R90.
- Meroni PL, et al. Updating on the pathogenic mechanisms of antiphospholipid antibody-associated pregnancy loss. Clin Rev Allergy Immunol. 2008;34(3):332-337.
- Blank M, Shoenfeld Y. Antiphospholipid antibody-mediated reproductive failure in antiphospholipid syndrome. Clin Rev Allergy Immunol. 2010;38(2–3):141-147.
- Babker A, et al. Frequency of ACE I/D and PAI-1 4G/5G polymorphisms in women with recurrent pregnancy loss in Sudan. Biomed Pharmacol J. 2025;18(3):1953-1961.
- Babker AM, et al. Detection of human platelet antigen polymorphisms (HPA-1 and HPA-3) and factor XIII mutation in Sudanese women with recurrent pregnancy loss. BMC Res Notes. 2024;17(1):66.
- Grover S, Del Greco MF, Stein CM, Ziegler A. Mendelian randomization. Methods Mol Biol. 2017;1666:581-628.
- Skrivankova VM, et al. Strengthening the reporting of observational studies in epidemiology using Mendelian randomization: The STROBE-MR statement. JAMA. 2021;326(16):1614-1621.
- Emdin CA, Khera AV, Kathiresan S. Mendelian randomization. JAMA. 2017;318(19):1925-1926.
- Burgess S, Thompson SG, CRP CHD Genetics Collaboration. Avoiding bias from weak instruments in Mendelian randomization studies. Int J Epidemiol. 2011;40(3):755-764.
- Hemani G, et al. The MR-Base platform supports systematic causal inference across the human phenome. eLife. 2018;7:e34408.
- Bowden J, Davey Smith G, Burgess S. Mendelian randomization with invalid instruments: Effect estimation and bias detection through Egger regression. Int J Epidemiol. 2015;44(2):512-525.
- Bowden J, Davey Smith G, Haycock PC, Burgess S. Consistent estimation in Mendelian randomization with some invalid instruments using a weighted median estimator. Genet Epidemiol. 2016;40(4):304-314.
- Hartwig FP, Davey Smith G, Bowden J. Robust inference in summary data Mendelian randomization via the zero modal pleiotropy assumption. Int J Epidemiol. 2017;46(6):1985-1998.
- Burgess S, Butterworth A, Thompson SG. Mendelian randomization analysis with multiple genetic variants using summarized data. Genet Epidemiol. 2013;37(7):658-665.
- Verbanck M, Chen CY, Neale B, Do R. Detection of widespread horizontal pleiotropy in causal relationships inferred from Mendelian randomization between complex traits and diseases. Nat Genet. 2018;50(5):693-698.
- Barrett T, et al. NCBI GEO: Archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(Database issue):D991-D995.
- Keleş İD, et al. Gene pathway analysis of the endometrium at the start of the window of implantation in women with unexplained infertility and unexplained recurrent pregnancy loss: Is unexplained recurrent pregnancy loss a subset of unexplained infertility? Hum Fertil (Camb). 2023;26(5):1129-1141.
- Kennedy WP, et al. Association of the interferon signature metric with serological disease manifestations but not global activity scores in multiple cohorts of patients with SLE. Lupus Sci Med. 2015;2(1):e000080.
- Matsumoto Y, et al. Characteristic DNA methylation profiles of chorionic villi in recurrent miscarriage. Sci Rep. 2022;12(1):11673.
- Sherman BT, Lempicki RA. Systematic and integrative analysis of large gene lists using DAVID bioinformatics resources. Nat Protoc. 2009;4(1):44-57.
- Szklarczyk D, et al. STRING v11: Protein–protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 2019;47(D1):D607-D613.
- Shannon P, et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-2504.
- Jia P, Zheng S, Long J, Zheng W, Zhao Z. dmGWAS: Dense module searching for genome-wide association studies in protein–protein interaction networks. Bioinformatics. 2011;27(1):95-102.
- Chin CH, et al. cytoHubba: Identifying hub objects and subnetworks from complex interactome. BMC Syst Biol. 2014;8(Suppl 4):S11.
- Mohammadi M. A projection neural network for the generalized Lasso. IEEE Trans Neural Netw Learn Syst. 2020;31(6):2217-2221.
- Kumar R, Indrayan A. Receiver operating characteristic (ROC) curve for medical researchers. Indian Pediatr. 2011;48(4):277-287.
- de Hond AAH, Steyerberg EW, van Calster B. Interpreting area under the receiver operating characteristic curve. Lancet Digit Health. 2022;4(12):e853-e855.
- Xu H, et al. Single-cell transcriptomics reveals CCL3+ classical monocyte subset linked to autoimmune pathogenesis. J Inflamm Res. 2025;18:16273-16291.
- Zych M, et al. Surface immune checkpoints as potential biomarkers in physiological pregnancy and recurrent pregnancy loss. Int J Mol Sci. 2024;25(17):9378.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-262.
- Liu J, Lu J, Wang G, Gu L, Li W. Prognostic characteristics of a six-gene signature based on ssGSEA in sarcoma. Aging (Albany NY). 2024;16(2):1536-1554.
- Mokbel A, et al. Pregnancy outcomes among Egyptian women with systemic lupus erythematosus: A prospective cohort study. Lupus. 2023;32(4):521-530.
- Illescas-Montes R, Corona-Castro CC, Melguizo-Rodríguez L, Ruiz C, Costela-Ruiz VJ. Infectious processes and systemic lupus erythematosus. Immunology. 2019;158(3):153-160.
- Banko A, et al. Epstein-Barr virus infection as a potential indicator of the occurrence and clinical presentation of systemic lupus erythematosus. Front Immunol. 2023;14:1307589.
- Nigro G, et al. Role of infections in recurrent spontaneous abortion. J Matern Fetal Neonatal Med. 2011;24(8):983-989.
- Yang D, et al. YY1-PVT1 affects trophoblast invasion and adhesion by regulating mTOR pathway-mediated autophagy. J Cell Physiol. 2020;235(10):6637-6646.
- Guan D, et al. Immunologic insights in recurrent spontaneous abortion: Molecular mechanisms and therapeutic interventions. Biomed Pharmacother. 2024;177:117082.
- Zhao X, et al. Identification of key biomarkers and immune infiltration in systemic lupus erythematosus by integrated bioinformatics analysis. J Transl Med. 2021;19(1):35.
- Villamayor L, et al. The IFN-stimulated gene IFI27 counteracts innate immune responses after viral infections by interfering with RIG-I signaling. Front Microbiol. 2023;14:1176177.
- Lim FY, et al. High-frequency home self-collection of capillary blood correlates IFI27 expression kinetics with SARS-CoV-2 viral clearance. J Clin Invest. 2023;133(23):e173715.
- Apps R, et al. Genome-wide expression profile of first-trimester villous and extravillous human trophoblast cells. Placenta. 2011;32(1):33-43.
- Li Y, et al. RNA sequencing of decidua reveals differentially expressed genes in recurrent pregnancy loss. Reprod Sci. 2021;28(8):2261-2269.
- Dankers W, et al. Failing maternal-fetal tolerance in SLE (FaMaLE): A prospective cohort study for finding the molecular mechanisms behind pregnancy complications. Lupus Sci Med. 2025;12(1):e001668.
- Xiang S, et al. Imbalance of helper T cell type 1, helper T cell type 2, and associated cytokines in patients with systemic lupus erythematosus: A meta-analysis. Front Pharmacol. 2022;13:988512.
- Tu J, et al. UC-BSC exosomes regulate Th17/Treg balance in patients with systemic lupus erythematosus via miR-19b/KLF13. Cells. 2022;11(24):4123.
- Wang W, et al. T helper (Th) cell profiles in pregnancy and recurrent pregnancy loss: Th1/Th2/Th9/Th17/Th22/Tfh cells. Front Immunol. 2020;11:2025.