Bu protokol, konjuge edilmemiş primer poliklonal antikorlar kullanılarak K562 insan eritrolösemi hücrelerindeki hücre içi proteinlerin akış sitometrisi ile tespitini açıklamaktadır. Antikor özgüllüğü, peptit kompetisyonu yoluyla boyanmanın doz bağımlı inhibisyonu ile gösterilmektedir.
Yöntem makalesi
Konjuge Olmayan Birincil Antikorlar Kullanılarak K562 İnsan Eritroleukemi Hücrelerinde Hücre İçi Proteinlerin Akış Sitometrik Tespiti
Bu makalede
Özet
Özet
Akış sitometrisi, protein ekspresyonunun tek hücre çözünürlüğünde kantitatif analizi için güçlü bir tekniktir. Bu protokol, konjuge edilmemiş primer poliklonal antikorlar ve florofor konjuge sekonder antikorlar kullanarak K562 insan eritroleukemi hücrelerindeki hücre içi proteinlerin saptanmasına yönelik bir iş akışını tanımlamaktadır. Antikor boyaması öncesinde hücreler sırasıyla fikse edilir, permeabilize edilir ve bloke edilir. Protokol, antikor inkübasyonunun fiksasyon ve permeabilizasyona göre sırasını değiştirerek, ayrı boyama iş akışları aracılığıyla yüzey veya hücre içi lokalizasyona sahip proteinlerin değerlendirilmesine olanak tanır. Splicing faktör 3a alt birim 1 (SF3A1) proteininin nükleer boyaması, afinite ile saflaştırılmış tavşan anti-SF3A1 poliklonal antikoru kullanılarak gösterilmiş ve antikor spesifitesi, ilgili antigenik peptit ile boyamanın doza bağımlı inhibisyonu aracılığıyla değerlendirilmiştir. Ek olarak, eritropoietin reseptörünün hücre içi domenini hedefleyen bir antikorun reaktivitesini değerlendirmek için boyama koşulları kullanılmıştır. Bu standardize edilmiş iş akışı, akış sitometrisinde konjuge edilmemiş primer antikorların kullanımını genişletmekte ve K562 insan eritroleukemi hücrelerinde protein ekspresyonu, lokalizasyonu ve antikor spesifitesinin değerlendirilmesi için pratik bir yaklaşım sunmaktadır.
Giriş
Akış sitometrisi, protein ekspresyonunun tek hücre çözünürlüğünde kantitatif değerlendirilmesine olanak tanıyan, böylece heterojen ve nadir hücre popülasyonlarının incelenmesini kolaylaştıran güçlü ve yaygın olarak kullanılan bir analitik araçtır1,2,3. Geleneksel akış sitometrisi yaklaşımları öncelikle hücre yüzey antijenlerini hedefleyen antikorları kullansa da, transkripsiyon faktörleri, RNA işleme regülatörleri ve ligand kaynaklı internalizasyona uğrayan reseptörler gibi fonksiyonel açıdan önemli birçok protein hücre içi kompartmanlarda yer alır. Sonuç olarak, bu sitoplazmik ve nükleer proteinlere standart yüzey boyama protokolleri kullanılarak erişilemez. Hücre membranlarının fikse edilmesi ve permeabilizasyonunu içeren hücre içi boyama yöntemlerinin entegrasyonu, geleneksel akış sitometrisi analizinin yüksek verimli ve multiparametrik yeteneklerini korurken; hücre içi proteinlerin, sitokinlerin ve sinyal iletim ara maddelerinin kantitatif değerlendirilmesine imkan tanıyarak akış sitometrisinin kullanım alanını önemli ölçüde genişletmiştir4,5,6,7.
Akış sitometrisi ile hem yüzeyle ilişkili hem de hücre içi proteinlerin tespit edilmesindeki temel bir kısıtlama, uygun antikorların bulunabilirliği ve çoğu durumda epitop veya immünojen dizilerinin eksik bilinmesidir8,9. İmmünofenotipleme stratejileri büyük ölçüde hücre yüzey markerlarına dayandığından, akış sitometrisi için valide edilmiş ticari olarak mevcut antikorların çoğu monoklonaldir, tek bir hücre dışı epitopu tanır ve önceden floroforlarla konjuge edilmiştir. Buna karşılık, poliklonal antikorlar hedef bir protein içindeki birden fazla epitopu tanıma kapasitesine sahiptir ve yaygın olarak western blotting, immünohistokimya veya immünofloresans için kullanılırlar. Ancak, bu antikorlar genellikle konjuge edilmemiştir ve bu nedenle standart akış sitometrisi iş akışlarıyla doğrudan uyumlu değildirler. Konjuge edilmemiş primer antikorların, florofor-konjuge ikincil antikorlarla birlikte kullanılması, tespit edilebilir hedef aralığını genişleten esnek bir alternatif sunar ve düşük bolluktaki proteinler için avantajlı olabilen sinyal amplifikasyonuna olanak tanıyabilir.
Bu sınırlamaları gidermek için, K562 insan eritroleukemi hücrelerinde protein boyama için bir protokol optimize ettik10. Hücre içi boyama, hücresel yapı ve durumun korunması için fiksasyonun yanı sıra antikorların hücre içi bölmelere erişebilmesi için permeabilizasyon gerektirir. Bu protokolde hücreler, hücresel morfolojiyi koruyan ve belirli koşullar altında hücre membranı geçirgenliğini artırabilen yaygın olarak kullanılan bir çapraz bağlayıcı fiksatif olan paraformaldehit (PFA) ile fikse edilir11,12,13,14. Etanol (EtOH) ile permeabilizasyon, nükleer hedeflere erişim de dahil olmak üzere antikorların hücre içi bölmelere girişini sağlar5,13,15. Permeabilizasyonu, konjuge edilmemiş primer poliklonal antikorlar ve florofor konjuge ikincil antikorlar ile boyama izler. Bu iş akışını kullanarak, yüzey dışı immünoreaktivitenin tespiti için tek başına PFA işlemi kullanılırken, nükleer hedef tespiti için ek bir EtOH permeabilizasyon adımı kullanılır. Peptit kompetisyonu ile nükleer boyama spesifitesinin değerlendirilmesi, antikor bağlanmasının spesifik peptit tarafından doz bağımlı olarak inhibe edildiğini ve spesifik olmayan bir kontrol tarafından edilmediğini göstermiştir. Genel olarak, konjuge edilmemiş primer poliklonal antikorların kullanımı, akış sitometrisinin uygulanabilirliğini florofor konjuge antikorlarla yapılan geleneksel yüzey belirteci analizinin ötesine taşır ve tek hücre çözünürlüğünde hücre içi protein ekspresyonunu değerlendirmek için esnek bir yaklaşım sunar.
Protokol
K562 hücreleri ticari olarak temin edilmiş olup, Arizona Üniversitesi Genetik Çekirdek ünitesi tarafından periyodik olarak doğrulanmış ve mikoplazma testinden geçirilmiştir. Bu çalışmada hiçbir insan katılımcı veya omurgalı hayvan yer almamıştır.
1. Reaktiflerin hazırlanması
- Hücreleri steril koşullar altında kültüre edin. Bu protokol için K562 insan miyelojen lösemi hücre hattını kullanın.
- K562 hücrelerini %10 fetal bovine serum ve %1 penisilin-streptomisin ile takviye edilmiş Roswell Park Memorial Institute (RPMI) ortamında, 37°C'de ve %5 CO₂16 altında çözün ve sürdürün. Çoğaltma için hücreleri yaklaşık 1 × 10⁵ hücre/mL yoğunlukta ekimleyin, kültürler önerilen maksimum hücre yoğunluğunun %75-%95'ine ulaştığında hasat edin ve 20 pasajdan fazla kültüre etmeyin. Boyama için hücreleri önerilen maksimum hücre yoğunluğunun %50-%75'indeyken hasat edin.
- Sınıf II biyogüvenlik kabini içerisinde steril 10× fosfat tamponlu salin (PBS) hazırlayın.
- 1 L'lik dereceli silindire eklenen 800 mL otoklavlanmış suya 80 g sodyum klorür (NaCl), 2 g potasyum klorür (KCl), 2.4 g potasyum fosfat monobazik (KH₂PO₄) ve 14.4 g sodyum fosfat dibazik (Na₂HPO₄) ekleyin.
- Bir manyetik balık ekleyin ve tüm toz çözünene kadar çözeltiyi manyetik karıştırıcı üzerinde karıştırın.
- pH'ı 7.2–7.4'e ayarlamak için bir pH probu kullanın. Final hacmini otoklavlanmış su ile 1 L'ye tamamlayın. Çözeltiyi, 0.2 µm gözenek boyutuna sahip naylon membranlı bir şişe üstü filtre kullanarak filtre ile sterilize edin.
- Sınıf II biyogüvenlik kabini içerisinde 900 mL otoklavlanmış suya 100 mL steril 10× PBS ekleyerek 10× PBS'yi 1× PBS'ye seyreltin.
- Sabitleme özellikli canlılık boyasını üretici talimatlarına göre hazırlayın. Bu protokol için, bir tüp liyofilize boyaya 50 µL dimetil sülfoksit (DMSO) ekleyin ve boya tamamen çözünene kadar vorteksleyin.
- Rekonstite edilen boyayı ışıktan koruyarak −20°C'de 1 yıla kadar saklayın. Tekrarlanan dondurma-çözme döngülerinden kaçınmak için boyayı küçük alikotlar halinde saklayın.
- %10 10× PBS, %86 su ve %4 fetal bovine serum (FBS) kombinleyerek floresanla aktive edilmiş hücre ayıklama (FACS) tamponu hazırlayın. Örneğin, 100 mL FACS tamponu hazırlamak için 10 mL 10× PBS, 86 mL su ve 4 mL FBS'yi birleştirin.
- Yalnızca yaklaşık 2 hafta boyunca ihtiyaç duyulacak hacimde FACS tamponu hazırlayın.
- FACS tamponunu 4°C'de saklayın.
- %1 paraformaldehit (PFA) hazırlayın.
DİKKAT: PFA'yı yanıcı, reaktif bir karsinojen olarak ele alın. Uygun kişisel koruyucu ekipman giyin ve PFA'yı onaylı bir kimyasal çeker ocak içerisinde hazırlayın.- 350 mL su ve 50 mL 10× PBS'yi karıştırın, çözeltiyi ısıtmalı karıştırıcıya yerleştirin ve 65°C'ye ısıtın. %4 PFA (ağırlık/hacim) hazırlamak için ısıtılmış çözeltiye kademeli olarak 20 g PFA tozu ekleyin.
- PFA'nın çözünmesini kolaylaştırmak için 1–3 damla 5 M sodyum hidroksit (NaOH) ekleyin. Çözeltiyi ısıtmalı karıştırıcı üzerinde yaklaşık 20 dakika boyunca karıştırın. pH'ı 7.4'e ayarlamak için bir pH metre kullanın.
- Final hacmini su ile 500 mL'ye tamamlayın.
- %4 PFA'yı 50 mL'lik hacimlerde alikotlayın ve −20°C'de 1 yıla kadar saklayın. Çözündükten sonra, %4 PFA'yı 4°C'de 2 aya kadar saklayın. Çözünmüş olan ve 2 ayı geçmiş tüm %4 PFA'ları atın.
- %4 PFA'yı 1× PBS kullanarak %1 PFA'ya seyreltin ve seyreltilmiş çözeltiyi 4°C'de 4 haftaya kadar saklayın17.
- 70 mL 200-proof etanol ile 30 mL Tip I ultra saf suyu birleştirerek soğuk %70 etanol (EtOH) hazırlayın.
- %70 EtOH'yi −20°C'de 1 yıla kadar saklayın. Permeabilizasyon için hücrelere eklemeden hemen önce çözeltiyi buzla soğuk tutun.
2. Hücreleri toplayın ve sayın
- Hücreleri 10 cm'lik bir doku kültürü plağından 15 mL'lik bir santrifüj tüpüne aktarın.
- Hücreleri çöktürmek için hücreleri 4°C'de, fren açık şekilde 600 × g'de 5 dakika santrifüjleyin.
- Kültür ortamını uzaklaştırın ve hücreleri 5 mL 1× PBS içinde yeniden süspanse ederek yıkayın. Hücreleri tekrar 4°C'de, fren açık şekilde 600 × g'de 5 dakika santrifüjleyin, ardından süpernatantı aspire ederek hücre peletini bırakın.
- Hücre peletini 1× PBS içinde yeniden süspanse edin. 10 µL hücre süspansiyonunu 10 µL trypan blue ile karıştırıp örneği bir hücre sayım lamına yükleyerek ve hücre konsantrasyonunu belirleyerek, bir hemositometre veya otomatik hücre sayıcı kullanarak hücreleri sayın.
NOT: Güvenilir sonuçlar sağlamak için yalnızca hücre canlılığı >%90 ise işleme devam edin. - Hücre süspansiyonunu 4°C'de, fren açık şekilde 600 × g'de 5 dakika santrifüjleyin ve süpernatantı aspire ederek hücre peletini bırakın. Hücreleri 2 × 10⁵ canlı hücre/mL (minimum 0.5 × 10⁵ canlı hücre/mL) yoğunluğa yeniden süspanse edin.
- Gerekli sayıdaki örnek ve kontrol akış tüplerine 1 mL hücre süspansiyonu dağıtın.
- Her bir hedef protein ve boyama iş akışı için ayrı örnek tüpleri hazırlayın. Yüzey (Pre-PFA), Post-PFA, Pre-EtOH ve Post-EtOH boyama koşulları, aynı hücrelerin ardışık boyaması yerine bağımsız örnek tüpleri kullanılarak gerçekleştirilir. Örneğin, iki hedef protein değerlendirilirken sekiz tüp hazırlayın: Tüp 1 (birincil antikor A, Pre-PFA), Tüp 2 (birincil antikor B, Pre-PFA), Tüp 3 (birincil antikor A, Post-PFA), Tüp 4 (birincil antikor B, Post-PFA), Tüp 5 (birincil antikor A, Pre-EtOH), Tüp 6 (birincil antikor B, Pre-EtOH), Tüp 7 (birincil antikor A, Post-EtOH) ve Tüp 8 (birincil antikor B, Post-EtOH).
NOT: Boyama iş akışında (Şekil 1) gösterildiği gibi, Pre-PFA ve Pre-EtOH örnekleri için birincil ve ikincil antikor boyamalarını 1. Gün'de gerçekleştirin. Post-PFA ve Post-EtOH örnekleri için birincil ve ikincil antikor boyamalarını 2. Gün'de gerçekleştirin. - Her bir işlem koşulu için boyanmamış ve tekli boyanmış kontrol tüpleri hazırlayın. Canlılık ve iki hedef protein değerlendiriliyorsa, her işlem koşulu için bir boyanmamış kontrol, bir sadece canlılık boyası kontrolü ve bir sadece ikincil antikor kontrolü hazırlayın.
NOT: Birincil antikor konjuge olmasa bile, analiz validasyonu sırasında veya spesifik olmayan birincil antikor bağlanması değerlendirilirken sadece birincil antikor kontrolü dahil edilebilir. - Tüm boyanmamış ve tekli boyanmış kontrol tüplerini, örnek tüpleriyle aynı işlemlere tabi tutun. Örnekler %1 PFA ile fikse ediliyor ve %70 EtOH ile permeabilize ediliyorsa, kontrol tüplerini de aynı şekilde işleyin.
- Her bir hedef protein ve boyama iş akışı için ayrı örnek tüpleri hazırlayın. Yüzey (Pre-PFA), Post-PFA, Pre-EtOH ve Post-EtOH boyama koşulları, aynı hücrelerin ardışık boyaması yerine bağımsız örnek tüpleri kullanılarak gerçekleştirilir. Örneğin, iki hedef protein değerlendirilirken sekiz tüp hazırlayın: Tüp 1 (birincil antikor A, Pre-PFA), Tüp 2 (birincil antikor B, Pre-PFA), Tüp 3 (birincil antikor A, Post-PFA), Tüp 4 (birincil antikor B, Post-PFA), Tüp 5 (birincil antikor A, Pre-EtOH), Tüp 6 (birincil antikor B, Pre-EtOH), Tüp 7 (birincil antikor A, Post-EtOH) ve Tüp 8 (birincil antikor B, Post-EtOH).
- Kompansasyon boncuklarını kullanarak tekli boyanmış kompanzasyon kontrolleri hazırlayın.
NOT: Kompanzasyon kontrollerini hazırlamak için hücreler yerine boncuklar kullanılabilir.- Her bir florofor için bir kompanzasyon kontrol tüpü ve bir boyanmamış kontrol tüpü etiketleyin. Bir canlılık boyası ve farklı floroforlarla işaretlenmiş iki ikincil antikor kullanılıyorsa dört tüp hazırlayın: bir boyanmamış kontrol, bir canlılık boyası kontrolü (florofor 1), bir ikincil antikor A kontrolü (florofor 2) ve bir ikincil antikor B kontrolü (florofor 3).
NOT: Amin-reaktif bir canlılık boyası kullanılıyorsa, canlılık boyası kontrolü için amin-reaktif kompanzasyon boncukları kullanın. - Her bir kompanzasyon kontrol tüpüne yalnızca bir boya veya antikor ekleyin, böylece her bir kontrol, akış sitometrik kompanzasyon sırasında tek bir florofor için pozitif olur.
- Her bir florofor için bir kompanzasyon kontrol tüpü ve bir boyanmamış kontrol tüpü etiketleyin. Bir canlılık boyası ve farklı floroforlarla işaretlenmiş iki ikincil antikor kullanılıyorsa dört tüp hazırlayın: bir boyanmamış kontrol, bir canlılık boyası kontrolü (florofor 1), bir ikincil antikor A kontrolü (florofor 2) ve bir ikincil antikor B kontrolü (florofor 3).
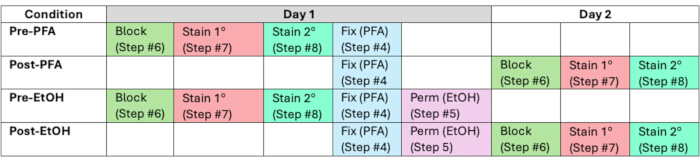
Şekil 1. Yüzeye ilişkili ve hücre içi hedef tespiti için optimize edilmiş boyama iş akışı. İş akışı, fikse edilebilir canlılık boyası boyamasının ardından fiksasyon, permeabilizasyon, bloklama, primer antikor boyama ve sekonder antikor boyamanın sırasını ve zamanlamasını göstermektedir. Pre-PFA, Post-PFA, Pre-EtOH ve Post-EtOH koşulları için ayrı iş akışları gösterilmiştir. Primer ve sekonder antikor boyamaları, Pre-PFA ve Pre-EtOH iş akışları için 1. günde, Post-PFA ve Post-EtOH iş akışları için ise 2. günde gerçekleştirilir. PFA, paraformaldehit; EtOH, etanol. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
3. Hücreleri tespit edilebilir bir canlılık boyası ile boyayın
- Hücreleri, üreticinin talimatlarına uygun olarak fikse edilebilir bir canlılık boyası ile boyayın. Ekleyin 1 µL (Adım 1.4'te hazırlanan) canlılık boyası stok çözeltisinden her bir örnek tüpüne ve 1 × 10 içeren ilgili canlılık boyası tekli boyanmış kontrol tüpüne doğrudan6 1 mL 1× PBS içindeki hücreler.
- 3 saniye boyunca hafifçe vorteksleyin ve örnekleri ışıktan koruyarak oda sıcaklığında 30 dakika inkübe edin.
NOT: Bu ve sonraki tüm adımlar boyunca hücreleri ışıktan koruyun. - Hücre süspansiyonunu 600 × g'de 5 dakika boyunca santrifüj edin. 4°C fren basılıyken süpernatantı aspire edin ve hücre peletini bırakın.
- Hücreleri 1 mL 1× PBS ile iki kez yıkayın ve nihai hücre peletini şunların içinde yeniden süspande edin: 100 µL 1× PBS içerisinde.
NOT: Florofor konjuge primer antikorlar ile hücre yüzeyi hedeflerini boyayacaksanız, fiksasyona geçmeden önce bu aşamada yüzey boyamasını üretici talimatlarına göre gerçekleştiriniz.
4. Hücreleri %1 PFA ile işlemden geçirin
NOT: Pre-PFA örnekleri için (bkz. Adım 2.6.1 ve Şekil 1), bu bölüme geçmeden önce 6, 7 ve 8. Adımları uygulayın.
- 100 µL 1× PBS içinde resüspande edilen hücrelere, tüm tekli boyanmış kontrol tüpleri de dahil olmak üzere, her bir örnek tüpüne 1 mL %1 PFA ekleyin. 3 s boyunca nazikçe vorteksleyin ve örnekleri oda sıcaklığında, ışıktan koruyarak 15–20 dk inkübe edin.
- Hücre süspansiyonunu, fren açık konumdayken 4°C'de 600 × g'de 5 dk santrifüjleyin. Süpernatantı aspire ederek uzaklaştırın ve hücre peletini bırakın.
- Hücre peletini 1 mL FACS tamponunda resüspande ederek iki kez yıkayın ve ardından fren açık konumdayken 4°C'de 600 × g'de 5 dk santrifüjleyin.
- Son hücre peletini 100 µL FACS tamponunda resüspande edin.
NOT: Fikse edilmiş hücreler (boyanmış veya boyanmamış), 1 mL FACS tamponu içinde 4°C'de 12–48 sa boyunca saklanabilir. Protokole devam etmek için hücre süspansiyonunu fren açık konumdayken 4°C'de 600 × g'de 5 dk santrifüjleyin, süpernatantı aspire edin ve hücre peletini 100 µL FACS tamponunda resüspande edin.
5. Hücrelerin EtOH ile permeabilize edilmesi
NOT: Pre-EtOH örnekleri için (bkz. Adım 2.6.1 ve Şekil 1), bu bölüme geçmeden önce 6, 7 ve 8. Adımları gerçekleştiriniz.
- 100 µL hücre süspansiyonu içeren her bir örnek tüpünün iç duvarına nazikçe 1 mL buz gibi soğuk %70 EtOH ekleyin, ardından hemen yaklaşık %50 güçte 5 s boyunca vorteksleyin. Bu işlemi geri kalan tüm örnek tüpleri ve tekli boyanmış kontrol tüpleri için tekrarlayın.
- Tüpleri ışıktan koruyarak −20°C'de en az 2 s boyunca inkübe edin.
NOT: Hücreler, protokole devam etmeden önce −20°C'de 1 mL %70 EtOH içerisinde 12–48 s boyunca saklanabilir. - Hücre süspansiyonunu 4°C'de, fren açık şekilde 600 × g'de 5 dk boyunca santrifüjleyin, ardından hücre peletini bırakacak şekilde süpernatanı aspire edin.
- Hücreleri üç kez 1 mL FACS tamponu ile yıkayın ve her yıkama arasında 4°C'de, fren açık şekilde 600 × g'de 5 dk santrifüjleyin.
- Final hücre peletini 100 µL FACS tamponu içinde yeniden süspande edin.
6. Hücreleri bloklama
- %92 FACS tamponu ve %8 NGS içeren nihai bir bloklama solüsyonu hazırlamak için her tüpe 820 µL FACS tamponu ve 80 µL normal keçi serumu (NGS) ekleyin. 3 s boyunca nazikçe vorteksleyin ve örnekleri oda sıcaklığında, sabit ve ışıktan korunmuş şekilde 30 dk inkübe edin.
- Hücre süspansiyonunu 4°C'de, fren açık şekilde 600 × g'de 5 dk santrifüjleyin, ardından hücre peletini bırakarak süpernatantı aspire edin.
- Peleti 1 mL FACS tamponu içinde yeniden süspanse ederek ve ardından Adım 6.2'de açıklanan şekilde santrifüjleyerek hücreleri iki kez yıkayın.
- Nihai hücre peletini 100 µL FACS tamponu içinde yeniden süspanse edin.
7. Hücreleri konjuge edilmemiş bir primer antikor ile boyayın
- 100 µL hücre süspansiyonuna 0.5 µL konjuge edilmemiş primer antikor ekleyin (1:200 dilüsyon). Numuneleri oda sıcaklığında, ışıktan koruyarak 1 sa boyunca inkübe edin.
NOT: 1:200 dilüsyonu önerilen bir başlangıç konsantrasyonudur ve diğer antikorlar için optimizasyon gerektirebilir.- Peptit kompetisyonu yapılacaksa, peptidi primer antikor eklemeden hemen önce ekleyin. Bu protokolde peptitler, reaksiyon karışımındaki antikor konsantrasyonuna (4.3 nM) göre hesaplanan 50 ile 0.625 arasındaki peptit-antikor molar oranlarında titre edilmiştir. Münferit peptit-antikor çiftleri için optimizasyon gerekebilir.
- 1 mL FACS tamponu ekleyin ve hücre süspansiyonunu 4°C'de, fren açık şekilde 600 × g'de 5 dk boyunca santrifüjleyin. Hücre peletini bırakarak süpernatantı aspire edin.
- Hücreleri 1 mL FACS tamponu ile iki kez daha yıkayın ve Adım 7.2'de açıklandığı gibi santrifüjleyin.
- Final hücre peletini 100 µL FACS tamponunda yeniden süspande edin.
8. Hücreleri florofor konjuge ikincil antikor ile boyayın
- Her bir numune tüpüne ve ilgili kontrol tüpüne 1:200 dilüsyonunda florofor konjuge ikincil antikor (100 µL hücre süspansiyonunda 0,5 µL antikor) ekleyin.
NOT: Bu protokolde Goat anti-rabbit DyLight 488 ikincil antikoru kullanılmıştır. - Numuneleri oda sıcaklığında, ışıktan koruyarak 1 sa boyunca inkübe edin.
- 1 mL FACS tamponu ekleyin. Hücre süspansiyonunu 4°C'de, fren açık konumdayken 600 × g'de 5 dk boyunca santrifüjleyin, ardından süpernatantı aspire ederek hücre peletini bırakın.
- Adım 8.3'te açıklanan santrifüj işlemini tekrarlayarak hücreleri 1 mL FACS tamponu ile iki kez yıkayın.
- Hücreleri 300–500 µL FACS tamponu içinde yeniden süspande edin.
NOT: Hücreler, akış sitometrik analizden önce 4°C'de, ışıktan korunarak FACS tamponu içinde 1–3 gün boyunca saklanabilir.
9. Örneklerin akış sitometrisi ile analiz edilmesi
- Uygun tekli boyanmış kontrolleri kullanarak floresan kompanzasyonu gerçekleştirin. Örnekleri bir akış sitometresinde analiz edin ve analiz için en az 5,000–10,000 canlı tek hücreli olay toplayın. Bu protokolde, veri toplama için FACSDiva yazılımı kullanılmıştır.
- Verileri, önce ileri saçılım alanı (FSC-A) ile yan saçılım alanı (SSC-A) kullanarak debrisleri dışlayarak, ardından FSC-yüksekliği (FSC-H) ile FSC-genişliği (FSC-W) ve SSC-yüksekliği (SSC-H) ile SSC-genişliği (SSC-W) kullanarak dubletleri dışlayarak analiz edin. Canlılık boyası kanalını kullanarak ölü hücreleri dışlayın.
- Kalan canlı tek hücrelerin ne kadarının seçilen hedef proteinler için pozitif veya negatif olduğunu analiz edin (bkz. Temsili Sonuçlar). Boyanmamış ve sadece sekonder antikorlu kontrolleri kullanarak pozitif kapıları (gate) belirleyin ve aynı veri toplama grubu içindeki tüm karşılaştırılabilir örneklere aynı kapılama kriterlerini uygulayın.
Sonuçlar
Burada açıklanan protokol, akış sitometrisi için valide edilmiş ticari antikorlarının bulunmadığı protein hedeflerinin hücre içi boyanmasına olanak tanır. Temsili bir örnek olarak, çekirdekte yerleşen ve her yerde ifade edilen bir ekleme (splicing) proteini olan splicing factor 3a subunit 1 (SF3A1) boyaması, SF3A1'in 18–37 arası amino asitlerine karşılık gelen bir peptide karşı üretilmiş bir tavşan poliklonal antikoru (SF3A118–37; EPKQPTEEEASSKEDSAPSK) kullanılarak değerlendirilmiştir18,19.
Boyama iş akışını değerlendirmek için hücreler, konjuge edilmemiş anti-SF3A1 ile boyanmıştır.18–37 yalnızca paraformaldehit (PFA) ile veya ardışık PFA + EtOH işlemi ile işlem görmüş veya görmemiş primer poliklonal antikor (Şekil 1 ve 2). Beklendiği üzere, PFA işlemi öncesinde boyanan örneklerde (Pre-PFA) veya ardışık PFA ve EtOH işlemi öncesinde boyanan örneklerde (Pre-EtOH) SF3A1-pozitif bir popülasyon tespit edilmemiştir (Şekil 2A). Yalnızca PFA işlemi sonrası gerçekleştirilen boyama (Post-PFA), küçük bir SF3A1-pozitif popülasyon tanımladı (Şekil 2B). Buna karşın, belirgin bir SF3A1-pozitif popülasyon yalnızca boyama EtOH permeabilizasyonundan sonra (Post-EtOH) gerçekleştirildiğinde gözlemlenmiştir (Şekil 2B). Bu bulgular, söz konusu iş akışının, sadece PFA uygulamasına kıyasla EtOH permeabilizasyonu sonrasında çok daha fazla SF3A1 boyanması tespit ettiğini göstermektedir.
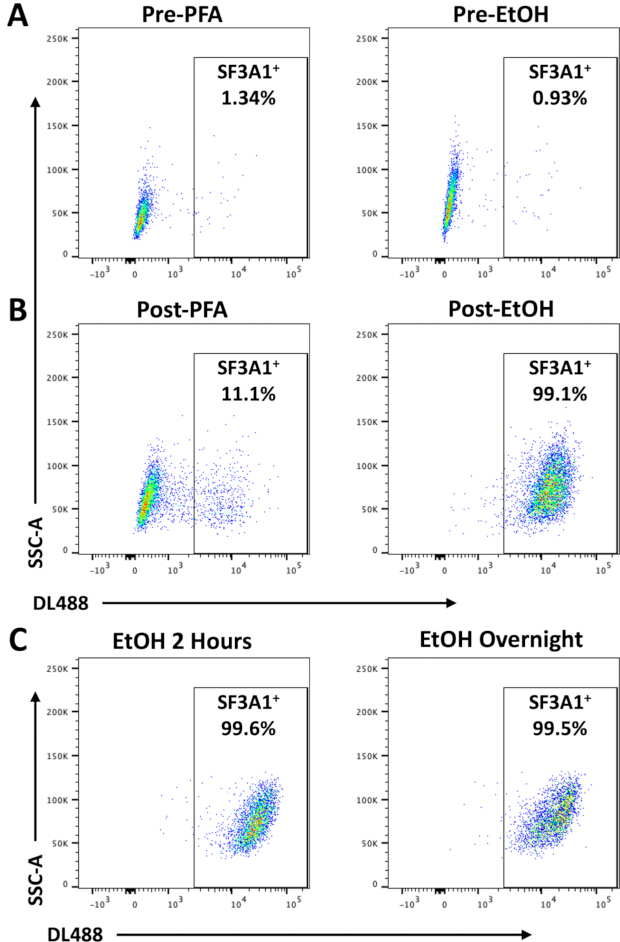
Şekil 2. Paraformaldehit fiksasyonu ve etanol permeabilizasyonu sonrası SF3A1 boyamasının değerlendirilmesi. DyLight 488 (DL488) floresansı ile yan saçılım alanı (SSC-A) değerlerini gösteren, canlı ve viabilite boyası negatif K562 hücrelerine ait temsili akış sitometrisi grafikleri. Kutuyla belirtilen bölge, SF3A1-pozitif (SF3A1⁺) popülasyonu göstermektedir. SF3A1, splicing factor 3a subunit 1; PFA, paraformaldehit; EtOH, etanol. (A) PFA fiksasyonu öncesinde (Pre-PFA; sol) veya ardışık PFA fiksasyonu ve EtOH permeabilizasyonu öncesinde (Pre-EtOH; sağ) gerçekleştirilen SF3A1 antikor boyaması. (B) PFA fiksasyonu sonrasında (Post-PFA; sol) veya ardışık PFA fiksasyonu ve EtOH permeabilizasyonu sonrasında (Post-EtOH; sağ) gerçekleştirilen SF3A1 antikor boyaması. (C) 2 h veya gece boyunca uygulanan EtOH permeabilizasyonu sonrası SF3A1 boyamasının karşılaştırılması. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
EtOH maruziyet süresinin boyamayı veya hücre bütünlüğünü etkileyip etkilemediğini belirlemek için hücreler 2 saat veya gece boyunca EtOH ile işleme tabi tutulmuştur. Akış sitometrik analiz, iki durum arasında boyama yoğunluğu veya görünür hücre bütünlüğü açısından belirgin bir fark göstermemiştir (Şekil 2C). Bu bulgular, test edilen koşullar altında 2 saatlik EtOH permeabilizasyonunun, gece boyu inkübasyonla kıyaslanabilir boyama sonuçları verdiğini göstermektedir.
EtOH permeabilizasyonunun saptanabilir SF3A1 boyanması sağladığı onaylandıktan (Şekil 2B) ve yarışmacı peptidin yokluğunda temel SF3A1 boyanması belirlendikten sonra (Şekil 3A), antikor spesifisitesi peptit yarışması ile değerlendirildi. Hücreler, ya SF3A118–37 ile ya da SF3A1'in 778–793 amino asitlerine karşılık gelen spesifik olmayan bir kontrol peptit (SF3A1778–793; GAVIHLALKERGGRKK) ile inkübe edildi. Peptitler, primer antikorla birlikte eklendi (Protokol, Adım 7). Spesifik peptit SF3A118–37'nin fazlası ile yapılan inkübasyon, SF3A1-pozitif hücrelerin yüzdesini boyanmamış kontrolle karşılaştırılabilir bir seviyeye indirirken, spesifik olmayan peptit SF3A1778–793 boyanma profilini ölçülebilir düzeyde değiştirmedi (Şekil 3B,C). Peptit titrasyon deneyleri, uygun peptit SF3A118–37 tarafından antikor bağlanmasının doz bağımlı inhibisyonunu gösterdi (IC50 = 21.6 nM); buna karşın spesifik olmayan peptit SF3A1778–793'ün 50 kata kadar molar fazlalığında herhangi bir inhibisyon gözlenmedi (Şekil 3D). Bu sonuçlar, peptit yarışma analizinin, akım sitometrisi ile antikor bağlanmasının inhibisyonunu değerlendirmek için kullanılabileceğini göstermektedir.
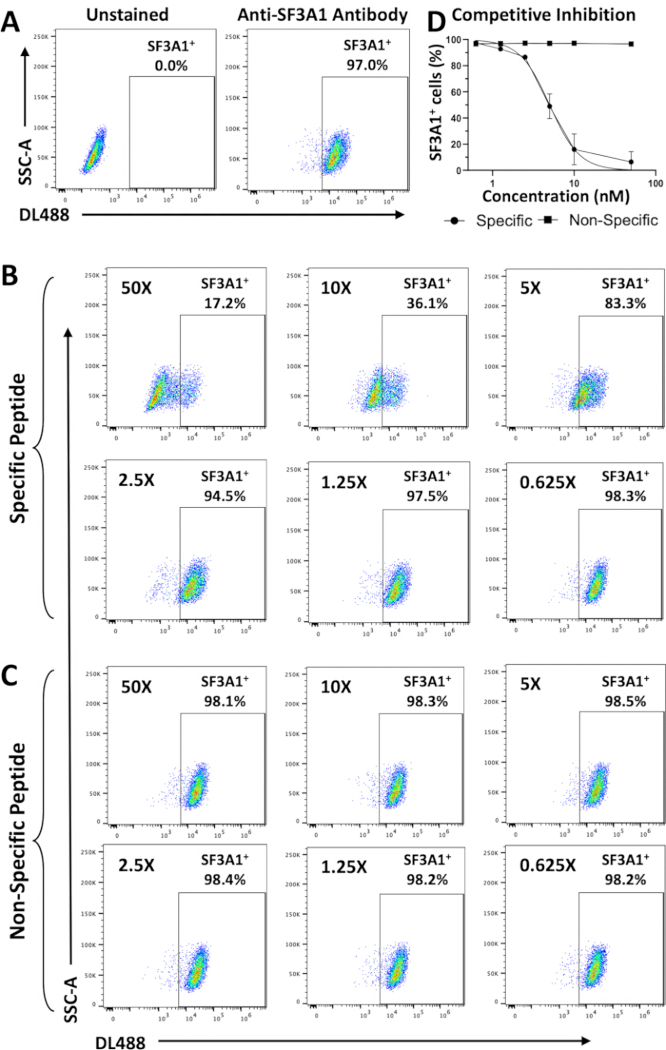
Şekil 3Kognat bir peptid tarafından SF3A1 antikor boyamasının doz bağımlı kompetitif inhibisyonu. DyLight 488 (DL488) floresansı ile yan saçılım alanının (SSC-A) karşılaştırıldığını gösteren, canlı, viabilite boyası negatif K562 hücrelerine ait temsili akış sitometrisi grafikleri. Kutu içine alınmış bölge, SF3A1-pozitif (SF3A1⁺) popülasyonu göstermektedir. SF3A1, splicing faktörü 3a alt birimi 1. (A) Boyanmamış kontrol ve anti-SF3A1 antikor boyaması. (B) Kongene SF3A1(18–37) peptidinin doz bağımlı eklemini takiben SF3A1 boyaması. (C) Spesifik olmayan SF3A1(778–793) peptidinin doz bağımlı eklemini takiben SF3A1 boyaması. Peptid konsantrasyonları 216, 43,3, 21,7, 10,8, 5,4 ve 2,7 nM idi; şekilde gösterilen karşılık gelen peptid-antikor molar oranları, 4,33 nM SF3A1 antikor konsantrasyonuna göre hesaplanmıştır. (D) SF3A1-pozitif hücrelerin yüzdesini peptid konsantrasyonunun bir fonksiyonu olarak gösteren kompetitif inhibisyon eğrisi. Kongene SF3A1(18–37) peptidi, antikor bağlanmasını doz bağımlı bir şekilde inhibe ederken, SF3A1(778–793) peptidi inhibe etmemiştir. Kongene peptid için yarı maksimal inhibitör konsantrasyonu (IC₅₀), değişken eğimli, en iyi uyumlu doğrusal olmayan inhibitör-normalize yanıt modeli kullanılarak 21,6 nM olarak belirlenmiştir. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
Son olarak protokol; reseptör biyosentezi sırasında ve ligand kaynaklı internalizasyonu takiben hücre içinde de bulunan bir hücre yüzeyi reseptörü olan eritropoietin reseptörünün (EpoR) tespiti için değerlendirildi20,21. EpoR; ekstraselüler bir N-terminal domain, 251–273 arası amino asitleri kapsayan tek bir transmembran bölge ve intraselüler bir C-terminal domainden oluşan 508 amino asitli bir proteindir. Daha önce western blotting, immünohistokimya ve immünofloresans için valide edilmiş ancak akış sitometrisi için valide edilmemiş22,23,24,25,26 konjuge edilmemiş bir tavşan poliklonal anti-EpoR antikoru (BS-1424R), yukarıda açıklanan boyama iş akışı kullanılarak uygulandı. Üreticiye göre BS-1424R, EpoR'un intraselüler domainindeki 330–365 arası amino asitlere karşı geliştirilmiştir.
Hücreler PFA işleminden önce boyandığında (Pre-PFA), Şekil 4A). Buna karşılık, K562 hücrelerinin yaklaşık %77'si yalnızca PFA uygulaması sonrası (Post-PFA) ve %84'ü ise sıralı PFA artı EtOH uygulaması sonrası (Post-EtOH) pozitifdi (Şekil 4B–D). SF3A1 boyamasının aksine, hem Post-PFA hem de Post-EtOH iş akışlarını takiben artmış EpoR boyaması gözlemlenmiştir (karşılaştırın Şekil 2B ve 4D). Bu bulgular, BS-1424R epitopunun EpoR'nin hücre içi etki alanı içindeki konumuyla tutarlıdır. Her iki boyama koşulunda da EpoR immünoreaktivitesinin saptanması, PFA işleminin K562 hücrelerinin plazma membranını, antikorun hücre içi epitopa bağlanmasına izin verecek şekilde yeterince geçirgenleştirdiğini göstermektedir. Bu iş akışında, tek bir sekonder antikor kullanımı, yüzey ve hücre içi EpoR havuzlarının ayrı ayrı işlenmiş ve boyanmış örnekler kullanılarak değerlendirilmesini gerektirir. Bu sınırlama, türe özgü sekonder antikorlarla çoklu saptamaya olanak sağlamak için farklı konak türlerde üretilmiş primer antikorlar kullanılarak aşılabilir.
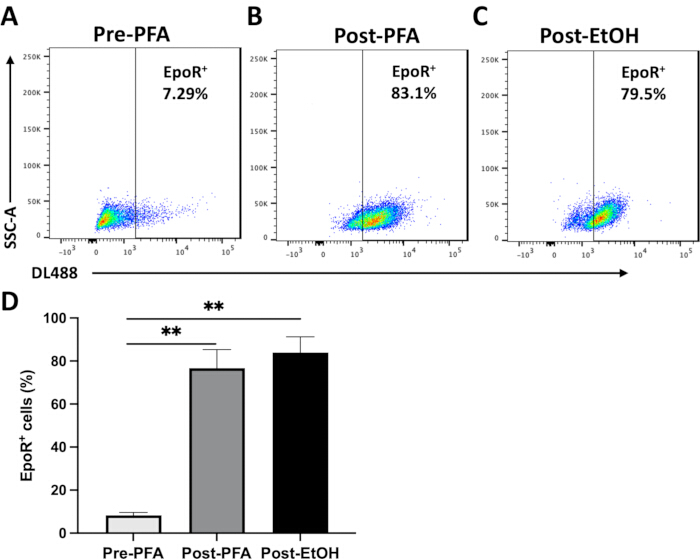
Şekil 4. Farklı fiksasyon ve permeabilizasyon koşullarının ardından K562 hücrelerinde eritropoietin reseptörünün (EpoR) tespiti. Canlı, viabilite boyası negatif K562 hücrelerinin DyLight 488 (DL488) floresansı ile yan saçılım alanını (SSC-A) gösteren temsili akış sitometrisi grafikleri. Kutulu bölge, EpoR-pozitif (EpoR⁺) popülasyonu göstermektedir. EpoR boyaması, EpoR'un hücre içi domenindeki 330–365 amino asitlere karşı üretilmiş BS-1424R poliklonal antikoru kullanılarak gerçekleştirilmiştir. (A) PFA fiksasyonu öncesi EpoR boyaması (Pre-PFA). (B) PFA fiksasyonu sonrası EpoR boyaması (Post-PFA). (C) Sıralı PFA fiksasyonu ve EtOH permeabilizasyonu sonrası EpoR boyaması (Post-EtOH). (D) Her bir boyama koşulunda EpoR-pozitif hücrelerin nicelleştirilmesi. Veriler, üç bağımsız deneyden (n = 3) elde edilen ortalama ± ortalamanın standart hatası (SEM) olarak sunulmuştur. İstatistiksel anlamlılık Student's t-testi kullanılarak belirlenmiştir. ** işareti P < 0.01 değerini belirtmektedir. Gösterilen karşılaştırmalar Pre-PFA ile Post-PFA ve Pre-PFA ile Post-EtOH arasındadır. Ab, antikor; EpoR, eritropoietin reseptörü; PFA, paraformaldehit; EtOH, etanol. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Tartışma
Burada sunulan sonuçlar, konjuge edilmemiş primer antikorlar kullanılarak hücre içi akış sitometrisi ile proteinlerin saptanması için birkaç kritik parametreyi vurgulamaktadır. Önemli bir husus, hedef proteinin hücre içi lokalizasyonuna göre seçilmesi gereken permeabilizasyon stratejisidir. Burada açıklanan iş akışında, PFA fiksasyonunun ardından uygulanan EtOH permeabilizasyonu nükleer protein SF3A1'in saptanmasını sağlamışken, EpoR immünoreaktivitesi hem Post-PFA hem de Post-EtOH iş akışları kullanılarak saptanmıştır. Yüzey proteinleri değerlendirilirken boyama PFA işleminden önce gerçekleştirilmeli, hücre içi boyama ise PFA işleminden sonra ve gerektiğinde ek EtOH permeabilizasyonu ile takip edilerek yapılmalıdır. Bu iş akışı, farklı boyama koşulları kullanılarak immünofenotipik olarak tanımlanmış hücre popülasyonları içinde yüzeyle ilişkili ve hücre içi proteinlerin değerlendirilmesine olanak tanır.
PFA genellikle bir hücre fissiklatifi olarak kullanılsa da, %1 PFA ile işlem yapılması K562 hücrelerinin plazma membranını, EpoR antikorunun hücre içi bir epitopa bağlanmasına izin verecek derecede yeterince permeabilize etmiştir. PFA aracılı permeabilizasyonun HEK293T ve HeLa hücreleri de dahil olmak üzere diğer hücre hatlarında da antikor girişine izin verdiği gösterilmiştir; ancak bu, daha yüksek bir PFA konsantrasyonu (%4) kullanılarak gerçekleştirilmiştir11. Bu farklılıklar, PFA'nın hücre tipine özgü etkileri olduğunu düşündürmektedir; bu nedenle, epitop tespitini maksimize etmek için fiksasyon koşullarının optimizasyonu gerekebilir. Alternatif hücre permeabilizasyon reaktifleri arasında, farklı mekanizmalarla etki eden saponin, digitonin ve Triton X-100 deterjanları yer almaktadır. Triton X-100 hücresel membranları spesifik olmayan şekilde permeabilize ederken, saponin ve digitonin kolesterole ve diğer membran sterollerine bağlanarak hücreleri permeabilize eder27. Çalışmalar, düşük digitonin konsantrasyonlarının mitokondriyal ve nükleer membranların bütünlüğünü korurken plazma membranını seçici olarak permeabilize ettiğini göstermiştir28,29,30. Bu nedenle, bu reaktiflerin uygun kombinasyonları farklı subselüler kompartmanlar içindeki protein lokalizasyonunu ayırt etmek için kullanılabilir, ancak bu yaklaşımların bir sınırlaması hücre içi antijenlerin ve epitop bütünlüğünün potansiyel kaybıdır13,31.
Protokol kolayca uyarlanabilir ve deneysel gereksinimlere göre modifiye edilebilir. Örneğin, EtOH uygulama süresi, boyama performansı veya hücre bütünlüğünde belirgin bir kayıp olmaksızın ayarlanabilir; bu durum, özellikle permeabilizasyon öncesi ve sonrası boyama koşullarının paralel olarak yürütüldüğü çok günlük iş akışları için esneklik sağlar (Şekil 1). Protokol, primer insan hematopoetik hücreleri de dahil olmak üzere diğer hücre tiplerine de uygulanabilir; ancak, bu işlemler epitop erişilebilirliğini, antikor bağlanma verimliliğini, hücresel bütünlüğü ve floresan sinyal yoğunluğunu etkileyebileceği için fiksasyon, permeabilizasyon ve santrifüj koşullarının optimizasyonu gerekebilir14,32,33. Ayrıca, PFA ve EtOH maruziyet sürelerinin yanı sıra santrifüj koşullarının optimizasyonu, hücre canlılığının korunmasına ve aşırı hücre kaybının minimize edilmesine yardımcı olabilir. Benzer şekilde, antikor konsantrasyonu ve inkübasyon koşullarının optimizasyonunu takiben ek protein hedeflerinin saptanması da mümkündür.
Olası kısıtlamalar arasında, primer antikor konsantrasyonunun artırılması veya sekonder antikor amplifikasyonu kullanılarak iyileştirilebilecek düşük sinyal yoğunluğu yer almaktadır. Spesifik olmayan boyanma, bloklama koşullarının optimizasyonu veya peptit kompetisyonu yoluyla azaltılabilir. Poliklonal antikorların kullanımı, lotlar arası değişkenliğe yol açabilir ve hedef dışı bağlanma potansiyelini artırabilir; bu nedenle, antikor spesifitesi her uygulama için dikkatle doğrulanmalıdır. Ayrıca, peptit kompetisyonu immunize eden peptide bağlılık gösterir ancak antikor spesifitesini tek başına kanıtlamaz. Anti-SF3A1 antikoru durumunda, önceki immünopresipitasyon çalışmaları antikor spesifitesini belirlemiştir19. Antikor spesifitesini doğrulamak için kullanılan diğer tamamlayıcı yaklaşımlar arasında antijen tüketimi, gen nakavt (knockdown), gen nakavt (knockout) veya antijen-negatif hücre modellerinin kullanımı yer alır. Ek olarak, uygun kontroller uygulanmadığı sürece birden fazla sekonder antikor kullanımı çapraz reaktiviteye yol açabileceği ve multiplekslemeyi sınırlayabileceği için bu yaklaşım doğası gereği tüm çok renkli panellerle uyumlu değildir. Bu nedenle, arka plan boyanmasını minimize etmek ve sinyal çözünürlüğünü maksimize etmek için sekonder antikorların ve floroforların dikkatle seçilmesi önemlidir.
Burada açıklanan protokol, K562 insan eritroleukemi hücrelerindeki hücre içi proteinlerin akış sitometrik değerlendirmesi için bir iş akışı sunmaktadır. Ayrıca, peptid kompetisyonu ile antikor performansının değerlendirilmesini ve farklı boyama koşulları altında reseptör ilişkili immünoreaktivitenin belirlenmesini desteklemektedir. Bu yaklaşım, immünofenotipik olarak tanımlanmış hücre popülasyonları dahilinde transkripsiyon faktörleri, RNA-işleme proteinleri ve reseptör biyolojisi çalışmaları da dahil olmak üzere, hücresel diferansiyasyon sırasında veya hücre dışı stimülilere yanıt olarak protein ekspresyonundaki değişikliklerin araştırılması için yararlı olabilir. Ayrı bir çalışmada bu iş akışı, eritroid diferansiyasyon geçiren insan hematopoetik kök ve progenitör hücrelerinde eritropoietin aracılı hücre içi lipid metabolik enzim değişikliklerini incelemek için kullanılmış34 ve protokolün primer hücrelere uyarlanabilirliği kanıtlanmıştır. Genel olarak bu protokol, akış sitometrisinde konjuge edilmemiş primer antikorların uygulamasını genişletmekte ve kültürlenmiş hücrelerde protein ekspresyonunu değerlendirmek için esnek bir iş akışı sağlamaktadır.
Açıklamalar
Yazarların beyan edecek bir çıkar çatışması yoktur.
Teşekkürler
Yazarlar; National Institutes of Health bünyesindeki National Institute of General Medical Sciences (R01GM127464) ve National Cancer Institute (P30CA023074), Valley Research Partnership Program (VRP P1-4009 ve VRP77) ve Arizona Biomedical Research Center'dan (ABRC: RFGA2022-010-30) SS'ye sağlanan finansal desteği teşekkür ederek belirtirler. İçerik tamamen yazarların sorumluluğundadır ve National Institutes of Health'in resmi görüşlerini yansıtmayabilir. Yazarlar ayrıca, University of Arizona, College of Medicine–Phoenix, Flow Cytometry Core Facility Direktörü Dr. Mrinalini Kala'nın desteğine teşekkür ederler.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 10× Fosfat tamponlu salin (PBS) | Kurum içi | N/A | Alternatif: Ticari olarak mevcut PBS |
| 15 mL santrifüj tüpleri | VWR | 89039-664 | Alternatif: Uygun boyutta herhangi bir steril santrifüj tüpü |
| 5 mL yuvarlak tabanlı polistiren tüpler | Corning | 352052 | Alternatif: Mevcut sitometre ile uyumlu herhangi bir akış sitometrisi tüpü |
| Anti-rabbit DyLight 488 sekonder antikor | Thermo Fisher Scientific | PI35553 | Alternatif: Primer antikor konak türü ile uyumlu sekonder antikor |
| Otomatik hücre sayacı | Thermo Fisher Scientific | AMQAF2000 | Hemositometre alternatifi |
| ArC Amine Reactive Compensation Bead Kit | Thermo Fisher Scientific | A10628 | Alternatif: Hücreler; tekli boyama kontrolleri için hücre kullanılıyorsa, tüm kontrol tüpleri örnek tüpleriyle aynı şekilde işlenmelidir |
| Şişe üstü filtre | Thermo Fisher Scientific | 595-4520 | Naylon membran; 0.2 µm |
| Hücre sayım lamları | Thermo Fisher Scientific | C10228 | Yalnızca otomatik hücre sayacı kullanıldığında gereklidir |
| Dimetil sülfoksit (DMSO) | Canlılık boya kiti ile sağlanmıştır | N/A | Liyofilize canlılık boyasını yeniden çözmek için kullanılır |
| Etanol, 200 proof | Thermo Fisher Scientific | BP28184 | Moleküler biyoloji sınıfı; buz gibi soğuk %70 etanol hazırlamak için kullanılır |
| Eritropoietin Reseptörü Primer Poliklonal Antikor | Bioss | BS-1424R | |
| Fetal sığır serumu (FBS) | Omega Scientific | FB-12 | Alternatif: Hedef hücre hattı için valide edilmiş herhangi bir FBS |
| Akış sitometresi | BD Biosciences | BD Canto II | Alternatif: Herhangi bir uygun akış sitometresi |
| Hemositometre | Hausser Scientific | HS3200 | Alternatif: Otomatik hücre sayacı |
| Isıtmalı manyetik karıştırıcı | Thermo Fisher Scientific | SP88857100 | PBS ve paraformaldehit hazırlama için kullanılır |
| K562 insan miyelojen lösemi hücreleri | ATCC | CCL-243 | Kimliği doğrulanmış başka herhangi bir kaynaktan satın alınabilir |
| Live-or-Dye fikse edilebilir canlılık boyası (405/545) | Biotium | 32009 | Alternatif: Herhangi bir uyumlu fikse edilebilir canlılık boyası. Fikse edilemeyen boyalar (örneğin, 7-AAD) uygun değildir |
| Normal keçi serumu | Thermo Fisher Scientific | 16210064 | Bloklama için kullanılır |
| Paraformaldehit tozu | Sigma-Aldrich | P6148 | Alternatif: Ticari olarak mevcut paraformaldehit çözeltisi |
| pH metre/prob | Accumet | AB15 | Tampon pH'ını ayarlamak için kullanılır |
| Potasyum klorür (KCl) | Thermo Fisher Scientific | BP366-1 | |
| Potasyum fosfat monobazik (KH2PO4) | Thermo Fisher Scientific | BP362-1 | |
| SF3A1 Primer Poliklonal Antikor | Kurum içi | N/A | |
| Sodyum klorür (NaCl) | Thermo Fisher Scientific | BP358-1 | |
| Sodyum hidroksit çözeltisi (5 M) | MilliporeSigma | S8263 | Alternatif: Sodyum hidroksit peletlerinden 5 M'lık bir çözelti hazırlayın |
| Sodyum fosfat dibazik (Na2HPO4) | Thermo Fisher Scientific | BP332-1 | |
| Manyetik balık | VWR | 74950-286 | Manyetik karıştırıcı ile birlikte kullanılır |
| Tripan Mavisi, %0.4 | Thermo Fisher Scientific | 15250061 | Hücre canlılığı sayımı için kullanılır |
| UltraComp eBeads Kompansasyon Boncukları | Thermo Fisher Scientific | 01-2222-42 | Alternatif: Hücreler; tekli boyama kontrolleri için hücre kullanılıyorsa, tüm kontrol tüpleri örnek tüpleriyle aynı şekilde işlenmelidir |
Kaynaklar
- Schippel N, Sharma S. Dynamics of human hematopoietic stem and progenitor cell differentiation to the erythroid lineage. Exp Hematol. 2023;123:1-17. DOI:10.1016/j.exphem.2023.05.001.
- Schippel N, Kala M, Sharma S. Erythropoietin-dependent acquisition of CD71hiCD105hi phenotype within CD235a- early erythroid progenitors. Stem Cells. 2025;43(12). DOI:10.1093/stmcls/sxaf061.
- Robinson JP. Flow cytometry: past and future. BioTechniques. 2022;72(4):159-169. DOI:10.2144/btn-2022-0005.
- Freer G, Rindi L. Intracellular cytokine detection by fluorescence-activated flow cytometry: basic principles and recent advances. Methods. 2013;61(1):30-38. DOI:10.1016/j.ymeth.2013.03.035.
- Krutzik PO, Nolan GP. Intracellular phospho-protein staining techniques for flow cytometry: monitoring single-cell signaling events. Cytometry A. 2003;55(2):61-70. DOI:10.1002/cyto.a.10072.
- Manso BA, Medina KL. Standardized flow-cytometry-based protocol to simultaneously measure transcription factor levels. STAR Protoc. 2021;2(2):100485. DOI:10.1016/j.xpro.2021.100485.
- Hallden G, Andersson U, Hed J, Johansson SG. A new membrane permeabilization method for the detection of intracellular antigens by flow cytometry. J Immunol Methods. 1989;124(1):103-109. DOI:10.1016/0022-1759(89)90191-9.
- Kalina T, Lundsten K, Engel P. Relevance of antibody validation for flow cytometry. Cytometry A. 2020;97(2):126-136. DOI:10.1002/cyto.a.23895.
- Voskuil JL. The challenges with the validation of research antibodies. F1000Res. 2017;6:161. DOI:10.12688/f1000research.10851.1.
- Koeffler HP, Golde DW. Human myeloid leukemia cell lines: a review. Blood. 1980;56(3):344-350.
- Bernard E, et al. Assessing the limitations of paraformaldehyde fixation for accurate cell surface receptor measurement. Front Pharmacol. 2026;17:1727410. DOI:10.3389/fphar.2026.1727410.
- Jamur MC, Oliver C. Permeabilization of cell membranes. Methods Mol Biol. 2010;588:63-66. DOI:10.1007/978-1-59745-324-0_9.
- Cheng R, et al. Influence of fixation and permeabilization on the mass density of single cells: a surface plasmon resonance imaging study. Front Chem. 2019;7:588. DOI:10.3389/fchem.2019.00588.
- Hobro AJ, Smith NI. An evaluation of fixation methods: spatial and compositional cellular changes observed by Raman imaging. Vib Spectrosc. 2017;91:31-45. DOI:10.1016/j.vibspec.2016.10.012.
- Schimenti KJ, Jacobberger JW. Fixation of mammalian cells for flow cytometric evaluation of DNA content and nuclear immunofluorescence. Cytometry. 1992;13(1):48-59. DOI:10.1002/cyto.990130109.
- Kandarian F, Sunga GM, Arango-Saenz D, Rossetti M. A flow cytometry-based cytotoxicity assay for the assessment of human NK cell activity. J Vis Exp. 2017;(126). DOI:10.3791/56191.
- Bapat A, Keita N, Sharma S. Pan-myeloid differentiation of human cord blood derived CD34+ hematopoietic stem and progenitor cells. J Vis Exp. 2019;(150). DOI:10.3791/59836.
- Martelly W, et al. Identification of a noncanonical RNA binding domain in the U2 snRNP protein SF3A1. RNA. 2019;25(11):1509-1521. DOI:10.1261/rna.072256.119.
- Sharma S, et al. Stem-loop 4 of U1 snRNA is essential for splicing and interacts with the U2 snRNP-specific SF3A1 protein during spliceosome assembly. Genes Dev. 2014;28(22):2518-2531. DOI:10.1101/gad.248625.114.
- Sulahian R, Cleaver O, Huang LJ. Ligand-induced EpoR internalization is mediated by JAK2 and p85 and is impaired by mutations responsible for primary familial and congenital polycythemia. Blood. 2009;113(21):5287-5297. DOI:10.1182/blood-2008-09-179572.
- Sinclair AM, et al. Erythropoietin receptor transcription is neither elevated nor predictive of surface expression in human tumour cells. Br J Cancer. 2008;98(6):1059-1067. DOI:10.1038/sj.bjc.6604220.
- Li X, et al. Oxidative stress induces the decline of brain EPO expression in aging rats. Exp Gerontol. 2016;83:89-93. DOI:10.1016/j.exger.2016.07.012.
- Liu T, et al. Multifaceted roles of a bioengineered nanoreactor in repressing radiation-induced lung injury. Biomaterials. 2021;277:121103. DOI:10.1016/j.biomaterials.2021.121103.
- Zhang Y, et al. Erythropoietin receptor is a risk factor for prognosis: a potential biomarker in lung adenocarcinoma. Pathol Res Pract. 2023;251:154891. DOI:10.1016/j.prp.2023.154891.
- Liu J, et al. Lithium chloride promotes endogenous synthesis of CLA in bovine mammary epithelial cells. Biol Trace Elem Res. 2024;202(2):513-526. DOI:10.1007/s12011-023-03679-z.
- Wu G, et al. EPO promotes the progression of rheumatoid arthritis by inducing desialylation via increasing the expression of neuraminidase 3. Ann Rheum Dis. 2024;83(5):564-575. DOI:10.1136/ard-2023-224852.
- Sudji IR, et al. Membrane disintegration caused by the steroid saponin digitonin is related to the presence of cholesterol. Molecules. 2015;20(11):20146-20160. DOI:10.3390/molecules201119682.
- Niklas J, Melnyk A, Yuan Y, Heinzle E. Selective permeabilization for the high-throughput measurement of compartmented enzyme activities in mammalian cells. Anal Biochem. 2011;416(2):218-227. DOI:10.1016/j.ab.2011.05.039.
- Liu J, Xiao N, DeFranco DB. Use of digitonin-permeabilized cells in studies of steroid receptor subnuclear trafficking. Methods. 1999;19(3):403-409. DOI:10.1006/meth.1999.0876.
- Krawczyk E, Suprynowicz FA, Sudarshan SR, Schlegel R. Membrane orientation of the human papillomavirus type 16 E5 oncoprotein. J Virol. 2010;84(4):1696-1703. DOI:10.1128/JVI.01968-09.
- Goldenthal KL, et al. Postfixation detergent treatment for immunofluorescence suppresses localization of some integral membrane proteins. J Histochem Cytochem. 1985;33(8):813-820. DOI:10.1177/33.8.3894499.
- Fahlberg MD, et al. Overcoming fixation and permeabilization challenges in flow cytometry by optical barcoding and multi-pass acquisition. Cytometry A. 2024;105(11):838-848. DOI:10.1002/cyto.a.24904.
- Law JP, et al. The importance of Foxp3 antibody and fixation/permeabilization buffer combinations in identifying CD4+CD25+Foxp3+ regulatory T cells. Cytometry A. 2009;75(12):1040-1050. DOI:10.1002/cyto.a.20815.
- Schippel N, et al. Erythropoietin mediates glycerophospholipid remodeling during human early erythropoiesis. bioRxiv. 2026. DOI:10.64898/2026.02.20.707106.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında