Bu protokol, makrofaj disfonksiyonuna yönelik mekanistik çalışmaları desteklemek amacıyla; lipid metabolizması, enflamatuar yanıtlar, oksidatif stres, apoptoz ve AMP-aktive protein kinaz ile ilişkili sinyal yolaklarını değerlendirerek, paeoniflorinin RAW264.7 makrofajlarında okside düşük yoğunluklu lipoprotein kaynaklı disfonksiyon üzerindeki etkilerini belirleme yöntemlerini açıklamaktadır.
Araştırma makalesi
Paeoniflorin, AMP-Aktive Protein Kinaz Katılımıyla Okside Düşük Yoğunluklu Lipoprotein Kaynaklı RAW264.7 Hücre Disfonksiyonunu Hafifletir
* These authors contributed equally
Bu makalede
Özet
Özet
Bu çalışma, Huangqin Tang (HQT) ve onun biyoaktif bileşenlerinden biri olan paeoniflorinin (PF), okside düşük yoğunluklu lipoprotein (ox-LDL) kaynaklı makrofaj disfonksiyonuna karşı koruyucu etkilerini değerlendirmek ve AMPK-aktive protein kinaz (AMPK) ile ilişkili sinyal yolaklarını incelemek amacıyla ağ farmakolojisi ve in vitro deneyleri entegre eden bir protokol tanımlamaktadır. Ağ farmakolojisi, ateroskleroz (AS) ile ilişkili HQT hedeflerini ve yolaklarını belirlemiştir. Lipid birikimi, kolesterol efluksu, adenozin trifosfat (ATP) seviyeleri, inflamatuar yanıtlar, mitokondriyal fonksiyon, oksidatif stres, apoptoz ve makrofaj fenotipik belirteçlerini değerlendirmek için ox-LDL ile indüklenmiş bir RAW264.7 makrofaj modeli kullanılmıştır. HQT ve PF, sitotoksik olmayan konsantrasyonlarda karşılaştırılmıştır. AMPK katılımı, hücre termal kayma analizi (CETSA), farmakolojik inhibisyon ve küçük müdahale edici RNA (siRNA) aracılı susturma kullanılarak değerlendirilmiştir. ATP-bağlayıcı kaset taşıyıcı A1 (ABCA1), karaciğer X reseptörü alfa (LXRα), nükleer faktör kappa B (NF-κB) ile ilişkili proteinler ve apoptozla ilişkili proteinler western blotting ile incelenmiştir. Ağ farmakolojisi; TNF, PPARG ve NOS3 dahil olmak üzere, lipid metabolizması, inflamasyon, AS ve AMPK sinyal yolağı ile ilgili yolaklarda zenginleşmiş 12 ortak hedef belirlemiştir. Hem PF hem de HQT, AMPK fosforilasyonunu artırmış, ox-LDL kaynaklı lipid birikimini ve inflamatuar sitokin salgılamasını azaltmış ve kolesterol efluksunu iyileştirmiştir. PF, ATP seviyelerini ve mitokondriyal membran potansiyelini geri kazandırmış, reaktif oksijen türleri üretimini ve apoptozu azaltmış ve ABCA1 ekspresyonunu artırmıştır. CETSA, PF uygulaması sonrası artmış AMPK termal stabilitesini göstermiştir. AMPK'nın farmakolojik inhibisyonu veya siRNA aracılı susturulması; ABCA1 ekspresyonu, kolesterol efluksu, lipid birikimi, LXRα aktivasyonu ve NF-κB inhibisyonundaki PF ile ilişkili değişiklikleri hafifletmiştir. PF, CD86⁺ makrofajları azaltırken CD206⁺ makrofajları artırmış, ancak AMPK susturulması bu değişiklikleri kısmen tersine çevirmiştir. NF-κB inhibisyonu, kolesterol homeostazı ve makrofaj fenotipik belirteçleri üzerinde benzer etkiler yaratmıştır. Bu protokol, PF ve HQT aracılı ox-LDL kaynaklı makrofaj disfonksiyonu ve AMPK ile ilişkili sinyal iletimi üzerindeki etkilerin değerlendirilmesine olanak tanır. Test edilen koşullar altında PF, RAW264.7 hücrelerini ox-LDL kaynaklı lipid metabolik disfonksiyonu, inflamasyon, oksidatif stres, mitokondriyal disfonksiyon ve apoptoza karşı korumuş; PF ve HQT makrofajla ilgili sonlanım noktalarında yönsel olarak benzer değişiklikler meydana getirmiştir.
Giriş
Kardiyovasküler hastalıklar dünya çapında morbidite ve mortalitenin önde gelen nedenleridir ve ateroskleroz (AS), birçok kardiyovasküler bozukluğun temel patolojik temelini oluşturur1,2,3,4. AS; lipid birikimi5, kronik inflamasyon6 ve arter duvarında plakların progresif oluşumu7 ile karakterizedir. Başlangıcı ve ilerlemesi; endotelyal disfonksiyon, oksidatif stres, düzensiz lipid metabolizması ve süregelen immün aktivasyonu içerir. Okside düşük yoğunluklu lipoprotein (ox-LDL), endotelyal aktivasyonu ve monosit kemoattraktan proteini-1 (MCP-1) gibi adezyon moleküllerinin ve kemokinlerin ekspresyonunu teşvik ederek monositlerin arteriyal intimaya katılımını kolaylaştırır8. Makrofajlara farklılaşan bu hücreler, scavenger reseptörler aracılığıyla ox-LDL'yi bünyelerine alır ve kademeli olarak lipid yüklü köpük hücrelerine dönüşürler9. Bu sürece, vasküler inflamasyonu ve oksidatif hasarı daha da ağırlaştıran reaktif oksijen türlerinin (ROS) ve pro-inflamatuar sitokinlerin artan üretimi eşlik eder10. Bu inflamatuar mediyatörler arasında tümör nekroz faktör-alfa (TNF-α), kısmen nükleer faktör kappa B (NF-κB) yolunun aktivasyonu aracılığıyla köpük hücre oluşumuna ve inflamatuar sinyale katkıda bulunur11. Dinlenme koşulları altında NF-κB, inhibitör of NF-κB alfa (IκB-α) ile etkileşimi sayesinde sitoplazmada tutulur12. Stimülasyon üzerine IκB kinaz (IKK) aktive olur; bu durum IκB-α'nın degradasyonuna ve ardından NF-κB'nin çekirdeğe translokasyonuna yol açar13; burada TNF-α, interlökin-1 beta (IL-1β) ve interlökin-6 (IL-6) dahil olmak üzere inflamatuar genlerin transkripsiyonunu teşvik eder14. Lipid düşürücü ve anti-inflamatuar tedavilerdeki gelişmelere rağmen, önemli bir rezidüel kardiyovasküler risk devam etmektedir ve bu durum, AS'ye dahil olan birden fazla patolojik süreci eş zamanlı olarak hedefleyen ek terapötik stratejiler geliştirme ihtiyacını vurgulamaktadır.
Geleneksel Çin tıbbı (TCM) formülasyonları, çeşitli moleküler hedefler ve sinyal yolakları ile etkileşimler yoluyla terapötik etkiler gösterebilen çok sayıda biyoaktif bileşen içerir15,16. Bu çok bileşenli ve çok hedefli etki biçimi, AS gibi karmaşık hastalıkların yönetimi için potansiyel avantajlar sunabilir. Huangqin Tang (HQT), dört tıbbi bitkiden oluşan klasik bir TCM formülüdür: Scutellaria baicalensis (Huangqin), Paeonia lactiflora (Baishao), Glycyrrhiza uralensis (Gancao) ve Ziziphus jujuba (Dazao)17,18. Bu bitkilerden türetilen biyoaktif bileşenlerin lipid metabolizmasını düzenlediği, inflamatuar yanıtları hafiflettiği ve oksidatif stresi azalttığı bildirilmiştir19. Ancak, HQT'nin potansiyel anti-aterosklerotik etkilerinin altında yatan moleküler hedefler ve sinyal yolakları henüz tam olarak anlaşılamamıştır.
Bu çalışmada, HQT ve onun biyoaktif bileşenlerinden biri olan paeoniflorinin (PF), ox-LDL kaynaklı makrofaj disfonksiyonuna karşı koruyucu etkilerinin altında yatan potansiyel mekanizmaları araştırmak için bir yöntem oluşturmak amacıyla ağ farmakolojisi in vitro deneylerle birleştirilmiştir. İlk olarak, HQT ve AS ile ilişkili aday bileşiklerin, terapötik hedeflerin ve sinyal yolaklarının belirlenmesi için ağ farmakolojisi analizi yapılmıştır. Tahmin edilen AMPK (AMP-aktive protein kinaz) sinyalizasyonu katılımı ve daha önce yayınlanmış kanıtlar temel alınarak, deneysel doğrulama için PF seçilmiştir. PF'nin lipid birikimi, kolesterol efluksu, enflamatuar yanıtlar, enerji metabolizması, mitokondriyal fonksiyon, oksidatif stres, apoptoz ve makrofaj fenotipik belirteçleri üzerindeki etkileri RAW264.7 hücrelerinde değerlendirilmiştir. Ayrıca HQT ve PF, sitotoksik olmayan koşullar altında karşılaştırılmıştır. Dahası, PF'nin koruyucu etkilerine ABCA1 (ATP-bağlayıcı kaset taşıyıcı A1) ve LXRα (karaciğer X reseptörü alfa)/NF-κB sinyalizasyonunun AMPK bağımlı düzenlemesinin katkıda bulunup bulunmadığını incelemek için farmakolojik inhibisyon ve küçük müdahale edici RNA (siRNA) aracılı AMPK susturma yöntemleri kullanılmıştır. Bu entegre yaklaşım, HQT ve PF aracılı ox-LDL kaynaklı makrofaj disfonksiyonu etkilerinin değerlendirilmesi ve bu yöntemin benzer in vitro modellerde AMPK ile ilgili mekanizmaları araştırmak için uygun olup olmadığının belirlenmesi için bir çerçeve sunmaktadır.
Protokol
GSE100927, kamuya açık, kimliği belirlenemeyen ikincil bir veri seti olarak analiz edilmiştir. Herhangi bir katılımcı alınmamış, yeni insan örnekleri toplanmamış ve doğrudan kişisel tanımlayıcılara erişilmemiştir; bu nedenle, ek kurumsal inceleme kurulu onayı ve bilgilendirilmiş onam gerekmemiştir. Hücre deneylerinde yalnızca yerleşik bir murin makrofaj hücre hattı kullanılmış olup; canlı hayvanlar, primer hayvan dokuları, insan katılımcılar veya primer insan materyalleri kullanılmamıştır; bu nedenle, kurumsal insan veya hayvan etik onayı uygulanabilir değildir.
HQT Biyoaktif Bileşenlerinin ve Hedeflerinin Belirlenmesi
Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP), PubMed, China National Knowledge Infrastructure (CNKI) ve UniProt veritabanlarına 16 Temmuz 2026 tarihinde mevcut olan sürümleri kullanılarak erişilmiştir. Scutellaria baicalensis Georgi, Paeonia lactiflora Pall., Glycyrrhiza uralensis Fisch. ve Ziziphus jujuba Mill., Latin, İngilizce ve Çince tıbbi isimleri kullanılarak TCMSP veritabanında ayrı ayrı aranmıştır. Oral biyoyararlanımı (OB) ≥30% ve ilaç benzerliği (DL) değeri ≥0.18 olan bileşikler tutulmuştur. Birden fazla botanik materyalde tanımlanan mükerrer bileşikler, bileşik adı ve karşılık gelen TCMSP tanımlayıcısı kullanılarak birleştirilmiştir.
PubMed, (“Huangqin Tang” OR “Huang-Qin-Tang” OR “Huang Qin Tang”) AND (constituent OR compound OR ingredient OR phytochemical OR target) terimleri kullanılarak; CNKI ise “Huangqin Tang” AND (“chemical constituents” OR “active ingredients” OR “pharmacological targets”) terimleri kullanılarak taranmıştır. 16 Aralık 2025 tarihine kadar yayınlanan makaleler incelenmiştir. Bileşikler veya hedefler, yalnızca HQT veya onun dört botanik bileşeninden biriyle olan ilişkileri açıkça rapor edildiğinde dahil edilmiştir. İzlenebilir birincil kanıtı olmayan derlemeler, isimlendirilmemiş bileşikler ve deneysel veya veri tabanı desteği olmayan öngörülen hedefler kapsam dışı bırakılmıştır.
Protein hedefleri, organizma Homo sapiens (takson tanımlayıcı 9606) ile sınırlandırılarak UniProt veri tabanındaki tanımlayıcı eşleştirme aracı kullanılarak haritalandırılmıştır. Onaylanmış insan gen sembolleri korunurken, eşleştirilemeyen ve yinelenen girişler çıkarılmıştır. Yinelenenlerden arındırılmış bileşik–hedef kenar listesi, HQT bileşik–hedef ağının oluşturulduğu Cytoscape ağ görselleştirme yazılımına (versiyon 3.7.2) aktarılmıştır.
AS ile İlişkili Hedeflerin Tanımlanması ve Biyoenformatik Analizi
GeneCards, Online Mendelian Inheritance in Man (OMIM), Comparative Toxicogenomics Database (CTD) ve Gene Expression Omnibus (GEO) veritabanlarına 16 Temmuz 2026 tarihindeki mevcut sürümleri kullanılarak erişilmiştir. GeneCards, OMIM ve CTD aramaları için “atherosclerosis” terimi kullanılmıştır. GeneCards üzerinden elde edilen kayıtlar arasından, tüm kayıtların medyan skoruna karşılık gelen ≥1.163 Alaka Puanına (Relevance Score) sahip genler tutulmuştur. OMIM ve CTD'den yalnızca doğrudan belgelenmiş AS ile ilişkili genler dahil edilmiştir.
GSE100927 seri matrisi, örnek açıklama dosyası ve GPL17077 platform açıklama dosyası GEO'dan indirilmiştir. Toplam 104 insan periferik arter örneği, veri deposu fenotip meta verilerine göre AS veya Kontrol olarak sınıflandırılmış ve arteriyel konuma göre herhangi bir örnek dışlanmamıştır.
Biyoinformatik analizler; R istatistik yazılımı (versiyon 4.3.2) ile limma paketi (versiyon 3.58.1), ggplot2 paketi (versiyon 3.4.4), ComplexHeatmap paketi (versiyon 2.18.0), clusterProfiler paketi (versiyon 4.10.1) ve org.Hs.eg.db paketi (versiyon 3.18.0) kullanılarak gerçekleştirilmiştir. Problar GPL17077 platform açıklama dosyası kullanılarak açıklanmış ve onaylanmış gen sembolleri olmayan problar çıkarılmıştır. Aynı gene eşleşen birden fazla probun ortalaması avereps fonksiyonu kullanılarak hesaplanmıştır. Log2(x + 1) dönüşümü yalnızca 99. persentil 100'ü aştığında uygulanmış; aksi takdirde sağlanan logaritmik değerler korunmuştur. Diziler quantile yöntemi kullanılarak normalize edilmiştir.
Örnekler “Kontrol” ve “AS” olarak kodlanmış ve model.matrix(~0 + group) kullanılarak kesişim noktası olmayan bir tasarım matrisi oluşturulmuştur. Lineer modeller lmFit, makeContrasts, contrasts.fit ve eBayes fonksiyonları kullanılarak uydurulmuştur. Tüm genler topTable(number = Inf, adjust.method = “BH”) kullanılarak çıkarılmıştır. Diferansiyel ekspresyon gösteren genler, mutlak log2 kat değişimi 1'den büyük ve nominal p değeri <0.05 olanlar olarak tanımlanmış; Benjamini–Hochberg düzeltmeli p değerleri ise tam çıktı içerisinde tutulmuştur.
Volkan grafikleri, log2 kat değişim değerleri ve −log₁₀ nominal p değerleri kullanılarak oluşturulmuştur. Isı haritaları, seçilen genlerin satır bazlı z-skoru standardizasyonunun ardından hazırlanmıştır. Tüm örneklere aynı ön işleme ve görselleştirme ayarları uygulanmıştır.
GeneCards, OMIM, CTD ve GEO'dan elde edilen genler, UniProt veri tabanı kullanılarak standartlaştırıldı. Gen tanımlayıcıları, onaylanmış büyük harf gen sembollerine dönüştürüldü ve her bir veri kaynağındaki boş, eşleştirilemeyen ve yinelenen girdiler kaldırıldı. Konsensüs AS ile ilişkili hedefler, dört veri kaynağından en az ikisinde tanımlanan genler olarak belirlendi. Standartlaştırılmış HQT hedef setiyle ortak olan genleri belirlemek için R'daki intersect() fonksiyonu kullanıldı.
Örtüşen HQT-AS hedefleri, 16 Aralık 2025 tarihinde erişilen STRING veri tabanına (versiyon 12.0) yüklendi. Analiz Homo sapiens ile sınırlandırıldı, minimum etkileşim skoru 0,700 olarak ayarlandı, tüm kanıt kanalları korundu ve birinci veya ikinci derece etkileşenler eklenmedi. Etkileşim tablosu dışa aktarıldı ve yönlendirilmemiş bir ağ olarak Cytoscape'e aktarıldı. Kendi kendine döngüler ve yinelenen kenarlar kaldırıldı; derece, arasılık ve yakınlık merkezilik değerleri CentiScaPe eklentisi (versiyon 2.2) kullanılarak hesaplandı. Hub genler, üç merkezilik ölçümünün tamamı ilgili ağ ortalamalarını aşan genler olarak tanımlandı.
Onaylanmış gen sembolleri, bitr fonksiyonu kullanılarak Entrez tanımlayıcılarına dönüştürüldü. Eşleşmeyen ve yinelenen tanımlayıcılar çıkarıldı ve açıklanmış veri setindeki tüm başarılı şekilde eşleşmiş genler arka plan olarak kullanıldı. Tüm ontolojiler için Gen Ontolojisi zenginleştirme analizi enrichGO (ont = “ALL”) kullanılarak, Kyoto Gen ve Genom Ansiklopedisi yolak zenginleştirme analizi ise enrichKEGG (organism = “hsa”) kullanılarak gerçekleştirildi. Benjamini–Hochberg düzeltmesi uygulandı ve ayarlanmış p değeri <0.05 olan zenginleşmiş terimler tutuldu.
Önişleme, diferansiyel ekspresyon, görselleştirme ve zenginleştirme işlemlerinin tamamı için gerekli betikler TCMSP analysis.R ve Transcriptome analysis.R olarak sağlanmıştır. Ağ analizi sonuçlarına ve yayınlanmış kanıtlara dayanarak, paeoniflorin (PF), likiritin, baikalin, wogonosid ve glisirizik asit temel HQT bileşenleri olarak belirlenmiştir20. Lipid metabolizmasını ve AMP-aktive protein kinaz sinyal yolunu düzenlemedeki rapor edilen rolleri nedeniyle PF, temsili bir bileşik olarak seçilmiştir.
HQT Ekstratının Hazırlanması
Kimliği doğrulanmış S. baicalensis Georgi, P. lactiflora Pall., G. uralensis Fisch. ve Z. jujuba Mill. bitkileri 3:2:2:3 kuru ağırlık oranında birleştirilmiştir. 1:10 (a/h) oranında deiyonize su eklenmiş ve karışım 1 saat boyunca reflüye edilmiştir. Ekstrakt sıcakken filtrelenmiş ve kalıntı, daha önce açıklandığı üzere19 1:8 (a/h) oranında deiyonize su ile 1 saat boyunca ikinci kez ekstrakte edilmiştir. Filtratlar birleştirilmiş, 60°C'de düşük basınç altında konsantre edilmiş ve sabit ağırlığa ulaşana kadar vakumlu kurutma işlemine tabi tutulmuştur; ekstraksiyon verimi %36,34 olarak belirlenmiştir. Kurutulmuş ekstrakt, 1 g/mL konsantrasyonda steril suda çözülmüş, 0,22 µm membran filtreden geçirilmiş, alikotlara ayrılmış ve kullanıma kadar −20°C'de saklanmıştır. Deneysel konsantrasyonlar, mililitre kültür ortamı başına mikrogram kurutulmuş ekstrakt olarak ifade edilmiştir.
Hücre Kültürü, Transfeksiyon ve Uygulama
RAW264.7 fare makrofajları; %10 fetal sığır serumu, 100 U/mL penisilin ve 100 µg/mL streptomisin ile desteklenmiş yüksek glukozlu Dulbecco modifiyeli Eagle besiyerinde, %5 CO2 içeren nemlendirilmiş bir inkübatörde 37°C'de kültüre edildi. Hücreler yaklaşık %80 konfluense ulaştıklarında pasajlandı ve çözdürme işleminden sonra yalnızca 5 ile 20. pasajlar arasındaki hücreler kullanıldı. Hücre hattı kimliği depo sertifikasıyla doğrulandı; hücre morfolojisi, adezyonu ve büyüme özellikleri rutin olarak izlendi. Yalnızca mikoplazma negatif kültürler kullanıldı. Kontaminasyon, anormal büyüme, belirgin vakuolizasyon, yoğun debris, aşırı kopma veya düzensiz hücre dağılımı sergileyen kültürler imha edildi.
AMPKα1 susturulması için hücreler, 6 kuyucuklu plaklarda, kuyucuk başına 2 mL kültür ortamında 2 × 10⁵ hücre olacak şekilde ekilmiş ve %50–60 konfluense ulaştıklarında transfekte edilmiştir. Toplam 100 pmol si-AMPKα1 veya hedef dışı siRNA 125 µL serumu azaltılmış ortamda seyreltilirken, 5 µL lipid bazlı transfeksiyon reaktifi ayrı olarak 125 µL serumu azaltılmış ortamda seyreltilmiştir. Oda sıcaklığında 15 dakika inkübasyonun ardından, iki çözelti birleştirilmiş ve nihai siRNA konsantrasyonu 50 nM olacak şekilde hücrelere damla damla eklenmiştir. si-AMPKα1 dizileri şu şekildedir: sense, 5′-CCCATCTTATAGTTCAACCAT-3′ ve antisense, 5′-ATGGTTGAACTATAAGATGGG-3′. Kültür ortamı 6 saat sonra değiştirilmiş ve ox-LDL ile PF uygulamasından önce toplam 48 saat boyunca inkübasyona devam edilmiştir. AMPKα1 nakavdown işlemi qRT-PCR ve western blotting ile doğrulanmış ve yalnızca negatif kontrol siRNA grubuna kıyasla anlamlı bir azalma gösteren deneyler sonraki analizlere dahil edilmiştir.
PF, dorsomorphin ve BAY 11-7082 dimetil sülfoksit (DMSO) içerisinde hazırlanırken, HQT steril su içerisinde hazırlanmıştır. Tüm tedavi gruplarında final DMSO konsantrasyonu ≤0.1% düzeyinde tutulmuş ve kontrol gruplarına ilgili taşıyıcı eklenmiştir.
Konsantrasyon taraması için hücreler 24 saat boyunca 0, 1, 5, 10, 20 veya 40 µM PF ya da 0, 12.5, 25, 50, 100 veya 200 µg/mL HQT ile işleme tabi tutulmuştur. Ardından hücre canlılığı ve AMPK fosforilasyonu değerlendirilmiştir. Bu sonuçlara dayanarak, sonraki tüm deneyler için 20 µM PF ve 100 µg/mL HQT seçilmiştir.
PF ve HQT'nin karşılaştırılması için tedavi grupları; bir kontrol grubu, 50 µg/mL ox-LDL grubu, ox-LDL artı 20 µM PF grubu ve ox-LDL artı 100 µg/mL HQT grubu şeklinde oluşturulmuştur. Tüm gruplar 24 h boyunca inkübe edilmiştir. AMPK'nin farmakolojik inhibisyonu için ox-LDL artı PF grubu, 24 h'lik eş zamanlı tedaviden önce 1 h boyunca 10 µM dorsomorfin ile ön işlemden geçirilmiştir21,22.
AMPK'nın genetik inhibisyonu için hücreler 48 sa boyunca si-NC veya si-AMPKα1 ile transfekte edilmiş ve ardından Kontrol, ox-LDL, PF veya si-AMPK artı PF gruplarına ayrılmıştır. PF ve si-AMPK artı PF gruplarına 24 sa boyunca 50 µg/mL ox-LDL ile birlikte 20 µM PF uygulanmıştır. ox-LDL grubuna yalnızca ox-LDL uygulanırken, Kontrol grubu ilgili taşıyıcıyı almıştır.
NF-κB sinyalizasyonunun etkisini değerlendirmek için, ek bir tedavi grubu 50 µg/mL ox-LDL'ye 24 h boyunca maruz bırakılmadan önce 1 h boyunca 10 µM BAY 11-7082 ile ön işlemden geçirilmiştir23,24,25. Ardından ABCA1 ekspresyonu, kolesterol efflüksü, lipid birikimi ve CD86⁺ ile CD206⁺ makrofajların oranları belirlenmiştir.
Aksi belirtilmedikçe, hücreler uygulamadan 12–16 saat önce ekilmiş ve her uygulama grubu için üç tekerrürlü kuyucuk kullanılmıştır. Hücre canlılığı taraması hariç, her analiz farklı günlerde üç bağımsız olarak kültüre edilmiş hücre preparatı kullanılarak gerçekleştirilmiştir (n = 3); hücre canlılığı taraması ise konsantrasyon başına beş teknik tekerrürlü kuyucuğun bulunduğu beş bağımsız deneyden oluşmuştur. Her bir bağımsız deney için tek bir değer elde etmek amacıyla teknik tekerrürler, çift ölçümler ve çoklu mikroskobik alanlar hiyerarşik olarak ortalanmıştır.
İşlem için yalnızca eşit şekilde yapışmış ve yaklaşık %60–80 konflüans düzeyine ulaşmış veya transfeksiyon deneyleri için %50–60 konflüans düzeyindeki kültürler kullanılmıştır. Gerekli malzemeler, yazılımlar ve ekipmanlar beraberindeki Malzemeler Tablosu'nda listelenmiştir.
Hücre Canlılık Analizi ve Kantitatif Real-Time PCR
RAW264.7 hücreleri, 96 kuyucuklu plakaların her kuyucuğuna 5 × 10³ hücre olacak şekilde ekilmiş ve gece boyunca tutunmalarına izin verilmiştir. Hücreler, Bölüm 4'te belirtilen PF ve HQT konsantrasyonları ile 24 saat boyunca işleme tabi tutulmuştur. Hücre canlılığı, kültür ortamının 100 µL hücre canlılığı deneyi çalışma çözeltisi ile değiştirilmesinin ardından, 37°C'de karanlıkta 2 saat inkübe edilmesiyle belirlenmiştir. Absorbans 450 nm'de ölçülmüştür.
Sadece reaktif içeren boş kuyucuklar dahil edilmiş ve bunların absorbans değerleri tüm ölçümlerden çıkarılmıştır. Her konsantrasyon için beş teknik replikat kuyucuktan elde edilen absorbans değerlerinin ortalaması alınmıştır. Hücre canlılığı, işlem görmemiş kontrol %100 olarak tanımlanarak (işlem görmüş grup absorbansı/kontrol grubu absorbansı) × 100 şeklinde hesaplanmıştır. Beş bağımsız deney gerçekleştirilmiştir.
Toplam RNA, bir fenol-guanidinyum RNA ekstraksiyon reaktifi kullanılarak ekstrakte edilmiş ve yalnızca A260/A280 değerleri 1.8 ile 2.0 arasında olan örnekler kullanılmıştır. Bir mikrogram toplam RNA ters transkripsiyona tabi tutulmuş ve her 20 µL kantitatif PCR (qPCR) reaksiyonu 10 µL 2× SYBR Green master mix, her biri 10 µM olan 0.4 µL ileri ve geri primer, 2 µL cDNA ve 7.2 µL nükleaz içermeyen su içermiştir.
Kantitatif PCR, 95°C'de 30 s boyunca gerçekleştirilmiş, ardından 95°C'de 10 s ve 60°C'de 30 s şeklinde 40 döngü uygulanmıştır. Sonrasında, 65°C'den 95°C'ye kadar bir erime eğrisi analizi yapılmıştır. Primer dizileri şu şekildedir: Prkaa1 ileri, 5′-ACCAGAAGCGGTGCCGGAAAGCTGG-3′; Prkaa1 geri, 5′-TGTAGTCGGTTTATGCAGCAACGAG-3′; Gapdh ileri, 5′-CGACTTCAACAGCAACTCCCACTCTTCC-3′ ve Gapdh geri, 5′-TGGGTGGTCCAGGGTTTCTTACTCCTT-3′.
Her örnek teknik triplikat halinde analiz edildi ve kalıp içermeyen kontroller eklendi. Primer çiftleri, yalnızca tek bir erime piki gözlemlendiğinde ve kalıp içermeyen kontrollerde herhangi bir amplifikasyon saptanmadığında kabul edildi. Relatif Prkaa1 ekspresyonu, referans gen olarak Gapdh kullanılarak 2−ΔΔCt yöntemi ile hesaplandı ve si-NC grubundaki ekspresyon 1'e normalize edildi.
Lipid Birikimi, ATP Seviyeleri ve Kolesterol Efleksinin Ölçümü
Oil Red O boyaması için, RAW264.7 hücreleri 24 kuyucuklu plakalarda, kuyucuk başına 500 µL kültür ortamında 5 × 10⁴ hücre olacak şekilde ekildi. İşlemlerin ardından hücreler 500 µL fosfat tamponlu salin (PBS) ile iki kez yıkandı, 500 µL %10 nötr tamponlu formalin ile 20 dk boyunca fikse edildi, PBS ile iki kez yıkandı, 500 µL %60 izopropanol ile bir kez durulandı ve oda sıcaklığında 15 dk boyunca 500 µL taze hazırlanmış Oil Red O çalışma çözeltisi ile boyandı. Boyanan hücreler, arka plan berraklaşana kadar distile su ile yıkandı. Bölüm 8'de açıklandığı şekilde her kuyucuktan beş mikroskobik alan görüntülendi ve sabit bir renk eşiği kullanılarak Oil Red O-pozitif alanı, pozitif alanın toplam alanla bölünmesi × 100 şeklinde hesaplandı. Boyama sonuçları; yalnızca kontrol hücrelerinde minimal boyanma görüldüğünde, ox-LDL ile işlem görmüş hücrelerde belirgin hücre içi lipid damlacıkları izlendiğinde ve hücre dışı arka plan berrak kaldığında kabul edildi. Yaygın çökelekler, düzensiz boyanma veya yaygın hücre kopması gösteren örnekler hariç tutuldu ve boyama prosedürü tekrarlandı.
ATP ölçümü için hücreler, 6 kuyucuklu plakalarda, her kuyucuğa 2 mL kültür ortamı içerisinde 5 × 10⁵ hücre olacak şekilde ekildi. Uygulamanın ardından hücreler, 1 mL buz gibi soğuk PBS ile iki kez yıkandı, 200 µL ATP assay lizis tamponu ile lize edildi ve 4°C'de 5 dakika boyunca 12,000 × g hızında santrifüjlendi. Süpernatandan alınan 10 µL'lik bir alikot, 100 µL ATP saptama reaktifi ile karıştırıldı ve kemilüminesans ölçüldü. ATP konsantrasyonları standart bir eğriden hesaplandı. Her lizat çift paralel olarak ölçüldü ve üç bağımsız deneyin her birinde üç tekrar kuyucuk analiz edildi.
Kolesterol eflluks analizi için hücreler, 24 kuyucuklu plaklarda, kuyucuk başına 500 µL kültür ortamında 5 × 10⁴ hücre olacak şekilde ekildi. Tedavinin ardından hücreler, 24 saat boyunca 1 µg/mL NBD-kolesterol ile yüklendi, 500 µL PBS ile üç kez yıkandı ve 10 µg/mL apolipoprotein A-I veya 50 µg/mL yüksek yoğunluklu lipoprotein içeren 500 µL serumsuz ortamda 4 saat inkübe edildi. Kültür süpernatantları toplandı ve 5 dakika boyunca 1.000 × g hızında santrifüj edildi. Hücreler PBS ile iki kez yıkandı ve 200 µL liziz tamponu ile lize edildi. Süpernatant ve lizatlardaki floresans, sırasıyla 485 ve 535 nm eksitasyon ve emisyon dalga boylarında çift örnek olarak ölçüldü. NBD-kolesterol içermeyen kuyucuklardan elde edilen floresans değerleri çıkarıldı ve kolesterol eflluksu, her bir kolesterol akseptörü için süpernatant floresansının, süpernatant ve lizat floresanslarının toplamına bölünmesi ve × 100 ile çarpılması şeklinde hesaplandı.
İnflamatuar Sitokinlerin, Mitokondriyal Membran Potansiyelinin, Reaktif Oksijen Türlerinin ve Apoptozun Ölçümü
Enzim bağlı immünosorbent assay (ELISA) için, RAW264.7 hücreleri 6 kuyucuklu plakaların her bir kuyucuğuna 2 mL kültür ortamı içerisinde 5 × 10⁵ hücre olacak şekilde ekildi. 24 saatlik işlemin ardından kültür süpernatanları toplandı, 4°C'de 10 dakika boyunca 1.000 × g hızında santrifüj edildi ve ya hemen analiz edildi ya da alikotlara ayrılarak analiz edilene kadar −80°C'de saklandı. Tekrarlanan dondurma-çözme döngülerinden kaçınıldı. Fare TNF-α, IL-6 ve IL-1β konsantrasyonları, sandviç ELISA kitleri kullanılarak ölçüldü. Tüm reaktifler kullanımdan önce oda sıcaklığına getirildi. Standartlar, boşlar ve örnekler her kuyucuğa 100 µL olacak şekilde duble olarak yüklendi. Her antikor inkübasyonundan sonra kuyucuklar 300 µL yıkama tamponu ile beş kez yıkandı. Renk gelişimi tetrametilbenzidin substratı kullanılarak sağlandı, reaksiyon üretici talimatlarına göre sonlandırıldı ve absorbans 450 nm'de ölçüldü. Sitokin konsantrasyonları, dört parametreli lojistik standart eğrilerinden hesaplandı ve pg/mL olarak ifade edildi. Varyasyon katsayısı %15'ten büyük olan duble ölçümler tekrarlandı ve analiz aralığını aşan örnekler yeniden analizden önce dilüe edildi.
Mitokondriyal membran potansiyeli analizi için hücreler, 24 kuyucuklu plakaların her bir kuyucuğuna 500 µL kültür ortamında 5 × 10⁴ hücre olacak şekilde ekildi. Uygulamanın ardından hücreler iki kez yıkandı ve karanlıkta 37°C'de 20 dk boyunca 500 µL JC-1 çalışma çözeltisi ile inkübe edildi. Ardından hücreler boyama tamponu ile iki kez yıkandı ve aynı mikroskobik alanlardan sırasıyla 525/590 nm ve 490/530 nm eksitasyon/emisyon dalga boylarında kırmızı agregat ve yeşil monomer floresansı değerleri elde edildi. Sonrasında, arka planı çıkarılmış yeşil-kırmızı floresans oranı hesaplandı.
Hücre içi reaktif oksijen türleri (ROS) analizi için, hücreler 24 kuyucuklu plakaların her kuyucuğuna 5 × 10⁴ hücre olacak şekilde ekildi. Uygulamanın ardından hücreler, serumsuz ortam ile iki kez yıkandı ve 200 µL kültür ortamında seyreltilmiş 10 µL 2′,7′-diklordidrofluoressein diasetat ile 37°C'de, karanlıkta 2 saat boyunca inkübe edildi. İnkübasyon sırasında plakalar her 5 dakikada bir hafifçe çalkalandı. Ardından hücreler üç kez yıkandı ve floresans, sırasıyla 488 ve 525 nm eksitasyon ve emisyon dalga boylarında ölçüldü.
Apoptoz analizi için, hücreler 24 kuyucuklu plakaların her kuyucuğuna 5 × 10⁴ hücre olacak şekilde ekildi. Uygulama sonrası hücreler iki kez yıkandı, %4 paraformaldehit ile 20 dk sabitlendi, üç kez yıkandı ve PBS içinde %0,1 Triton X-100 ile 10 dk permeabilize edildi. Toplam 250 µL terminal deoksinükleotidil transferaz dUTP uç etiketleme (TUNEL) reaksiyon karışımı eklendi ve hücreler nemlendirilmiş karanlık bir bölmede 37°C'de 60 dk inkübe edildi. Üç yıkamanın ardından, çekirdekler 4′,6-diamidino-2-phenylindole (DAPI) ile 5 dk karşıt boyandı. Her deneye terminal deoksinükleotidil transferaz içermeyen bir negatif kontrol dahil edildi.
Korunmuş mitokondriyal membran potansiyeli, ağırlıklı olarak noktasal kırmızı JC-1 floresansı ile gösterilirken, membran depolarizasyonu artmış yaygın yeşil floresans ile gösterilmiştir. ROS görüntüleri, yalnızca yeşil floresans hücre içi olduğunda ve presipitatlar veya sinyal doygunluğu içermediğinde kabul edilmiştir. Apoptozis boyamaları, yalnızca kırmızı floresans ağırlıklı olarak nükleer olduğunda ve enzim içermeyen kontrol minimum arka plan sinyali sergilediğinde kabul edilmiştir.
Görüntüleme ve Kantitatif Analiz
Bright-field ve floresan görüntüler, dijital kameraya ve 20× objektife sahip ters floresan mikroskobu kullanılarak elde edilmiştir. Her kuyucuktan, biri merkezi ve dördü çevresel olmak üzere beş adet örtüşmeyen alan görüntülenmiştir. Çizikler, kuyucuk kenarları, ayrılmış hücre tabakaları veya büyük kalıntılar içeren alanlar, işlem kimlikleri açıklanmadan önce hariç tutulmuştur. Otomatik pozlama ve kazanç ayarları devre dışı bırakılmıştır. En güçlü floresan sinyalinin doygunluğa ulaşmamasını sağlamak amacıyla; aydınlatma şiddeti, pozlama süresi, kazanç, objektif ve görüntü boyutları, temsili Kontrol ve ox-LDL kuyucukları kullanılarak belirlenmiştir. Her bağımsız deney içindeki tüm işlem grupları için aynı görüntüleme ayarları korunmuştur. Eşleşmiş kırmızı ve yeşil floresan kanalları, mikroskop tablasının konumu değiştirilmeden elde edilmiştir. Düzenlenmemiş görüntüler, araştırmacı işlem atamalarına karşı kör kalırken ImageJ görüntü analiz yazılımı kullanılarak analiz edilmiştir. Hücre içermeyen bir bölgeden gelen arka plan sinyali çıkarılmış ve görüntü eşikleri, temsili Kontrol ve ox-LDL görüntüleri kullanılarak belirlenmiştir. Aynı eşikler her deney boyunca uygulanmıştır. Sadece şekil sunumu için tek tip tüm-görüntü düzenlemeleri yapılmıştır. JC-1 sonuçları, yeşil-kırmızı floresan oranı olarak ifade edilmiştir. Reaktif oksijen türleri ve apoptoz sinyalleri, analiz edilen alana göre normalize edilmiş, arka planı çıkarılmış ortalama floresan olarak ifade edilmiş olup; göreceli analizler için Kontrol grubunun ortalama değeri 1'e normalize edilmiştir. Her kuyucuk için tek bir değer elde etmek amacıyla beş mikroskobik alanın ortalaması alınmış ve her bağımsız deney için tek bir değer oluşturmak amacıyla üç kuyucuktan gelen değerlerin ortalaması hesaplanmıştır.
Western Blot Analizi
RAW264.7 hücreleri, 6 kuyuklu plakaların her kuyucuğuna 2 mL kültür ortamında 5 × 10⁵ hücre olacak şekilde ekildi ve her kuyucuktan bir protein lizatı hazırlandı. Tüm hücre protein ekstraksiyonu için hücreler, buz soğukluğundaki PBS ile iki kez yıkandı, proteaz ve fosfataz inhibitörleri ile desteklenmiş radyoimmünopresipitasyon analizi (RIPA) tamponu kullanılarak buz üzerinde 30 dakika boyunca liz edildi ve 4°C'de 15 dakika boyunca 12,000 × g hızda santrifüj edildi. Nükleer protein ekstraksiyonu için hücreler, 10 mM HEPES, 10 mM KCl, 1.5 mM MgCl2, 0.5 mM ditiyotreitol ve proteaz/fosfataz inhibitörleri içeren bir tamponda süspanse edildi ve buz üzerinde 15 dakika inkübe edildi. Son konsantrasyon %0.5 olacak şekilde noniyonik bir deterjan eklendi, ardından kısa süreli vorteksleme ve 4°C'de 5 dakika boyunca 700 × g hızda santrifüj işlemi uygulandı. Nükleer pelet; 20 mM HEPES, 420 mM NaCl, 1.5 mM MgCl2, 0.2 mM EDTA, %25 gliserol, 0.5 mM ditiyotreitol ve proteaz/fosfataz inhibitörleri içeren bir tamponda, aralıklı karıştırma ile buz üzerinde 30 dakika boyunca ekstrakte edildi. Ekstrakt daha sonra 4°C'de 15 dakika boyunca 14,000 × g hızda santrifüj edildi.
Protein konsantrasyonları bisinkoninik asit testi kullanılarak belirlendi. Her kuyucuğa eşit miktarda protein (25–30 µg) yüklendi, 95°C'de 5 dk ısıtıldı, %8–12 sodyum dodesil sülfat-poliakrilamid jellerde ayrıldı ve soğutma koşulları altında 100 V'ta 90 dk boyunca 0.45 µm poliviniliden florür membranlara aktarıldı. Toplam protein içeren membranlar %5 yağsız süt ile bloke edilirken, fosforile protein içeren membranlar polisorbat 20 içeren Tris-tamponlu salin içerisinde hazırlanan %5 sığır serum albümini ile 1 sa boyunca bloke edildi. Membranlar; AMPK, fosforile AMPK, BAX, BCL-2, caspase-3, ABCA1, p65, fosforile p65, LXRα, IκB-α, fosforile IκB-α ve histone H3'e karşı primer antikorlar ile 1:1.000 seyrelmede (1:2.000 seyrelmede kullanılan histone H3 hariç) 4°C'de gece boyunca inkübe edildi. GAPDH ve β-actin antikorları 1:5.000 seyrelmede kullanıldı. Primer antikor inkübasyonunun ardından membranlar, her biri 10 dk sürecek şekilde üç kez yıkandı ve 1:5.000 oranında seyreltilmiş horseradish peroksidaz-konjuge keçi anti-tavşan veya keçi anti-fare sekonder antikorlar ile 1 sa boyunca inkübe edildi. Ek yıkama işlemlerinden sonra protein bantları, geliştirilmiş kemilüminesans saptama reaktifi kullanılarak tespit edildi. Tüm hedef proteinler için doygun olmayan bantlar üreten en kısa pozlama süresi seçildi ve aynı membrandaki tüm gruplar için özdeş pozlama ve görüntü elde etme ayarları korundu.
Protein bantları, yerel arka plan çıkarma işleminin ardından ImageJ görüntü analiz yazılımı kullanılarak nicelendirildi. Toplam AMPK, ABCA1, BAX, BCL-2, caspase-3, IκB-α ve fosforile IκB-α değerleri GAPDH veya β-actin'e göre normalize edildi. Fosforile AMPK/toplam AMPK ve fosforile p65/toplam p65 oranları hesaplandı. Nükleer LXRα, p65 ve fosforile p65 seviyeleri histone H3'e göre normalize edildi ve her bir bağımsız deneydeki Kontrol veya si-NC grubunun ortalama değeri 1 olarak normalize edildi. Analize yalnızca beklenen moleküler ağırlıklarda belirgin bantlar, düşük arka plan, doygun olmayan sinyaller ve karşılaştırılabilir yükleme kontrolleri gösteren blotlar dahil edildi. Bozulmuş şeritler, eksik protein transferi, aşırı arka plan veya sinyal doygunluğu sergileyen membranlar yeniden işlendi veya analiz dışı bırakıldı. Ayrı ayrı hazırlanan protein lizatları kullanılarak üç bağımsız deney gerçekleştirildi.
Hücre Termal Kayma Analizi
RAW264.7 hücreleri, 100 mm'lik kültür kaplarında 10 mL kültür ortamında 3 × 10⁶ hücre olacak şekilde ekilmiş ve gece boyunca inkübe edilmiştir. Hücreler hasat edilmiş, buz gibi soğuk PBS ile iki kez yıkanmış, %0,4 NP-40 ve proteaz/fosfataz inhibitörleri içeren PBS içinde buz üzerinde 30 dk boyunca lize edilmiş ve 4°C'de 20.000 × g hızda 20 dk santrifüj edilmiştir. Berraklaştırılmış lizatlar 2 mg/mL protein konsantrasyonuna ayarlanmıştır. Berraklaştırılmış lizattan eşit hacimler, oda sıcaklığında 1 saat boyunca ya 20 µM PF ya da %0,1 DMSO ile inkübe edilmiştir. Her örnek 50 µL'lik alikotlara bölünmüş ve 37°C, 41°C, 45°C, 49°C, 53°C, 57°C, 61°C, 65°C, 69°C veya 73°C'de 3 dk boyunca ısıtılmıştır. Örnekler derhal 4°C'de 3 dk soğutulmuş ve 4°C'de 20.000 × g hızda 20 dk santrifüj edilmiştir. Çözünür süpernatantların eşit hacimleri, AMPK ve fosforile AMPK'yı tespit etmek için western blotting ile analiz edilmiştir. Her sıcaklıkta elde edilen sinyal, %100 olarak tanımlanan karşılık gelen 37°C sinyaline göre normalize edilmiştir. Çözünür protein bolluğu sıcaklığın bir fonksiyonu olarak grafiğe dökülmüş ve tüm analiz, bağımsız olarak kültüre edilmiş hücreler kullanılarak üç kez tekrarlanmıştır. Analize yalnızca tespit edilebilir 37°C referans bandı gösteren, artan sıcaklıkla birlikte çözünür AMPK'nın kademeli kaybı olan ve en yüksek sıcaklıklarda ciddi şerit bozulması veya çözünür protein miktarında anormal artışlar görülmeyen deneyler dahil edilmiştir.
Akış Sitometrisi Analizi
RAW264.7 hücreleri, 6 kuyucuklu plaklarda, kuyucuk başına 2 mL kültür ortamında 5 × 10⁵ hücre olacak şekilde ekildi. İşlem sonrası hücreler, buz gibi soğuk PBS ile iki kez yıkandı ve %2 fetal bovine serum ve 2 mM EDTA içeren PBS içerisinde bir hücre kazıyıcı kullanılarak nazikçe toplandı. Hücre süspansiyonları 4°C'de 5 dakika boyunca 400 × g hızında santrifüj edildi, PBS ile iki kez yıkandı ve numune başına yaklaşık 1 × 10⁶ hücre konsantrasyonuna ayarlandı. Hücreler, oda sıcaklığında karanlıkta 20 dakika boyunca fikslenebilir amin-reaktif bir canlılık boyası ile boyandı. Yıkama işleminin ardından, Fc reseptörleri anti-mouse CD16/32 antikoru ile 4°C'de 15 dakika boyunca bloke edildi. CD45, CD11b, F4/80, CD86 ve CD206'ya karşı florokrom-konjuge antikorlar, her 1 × 10⁶ hücre için antikor başına 5 µL olacak şekilde eklendi ve hücreler 4°C'de karanlıkta 30 dakika boyunca inkübe edildi.
Antikor boyamasının ardından hücreler iki kez yıkandı, 300 µL boyama tamponunda yeniden süspande edildi ve akış sitometrisi ile analiz edildi. Her örnek için toplamda en az 50.000 olay ve mümkün olduğunda en az 20.000 canlı CD45⁺CD11b⁺F4/80⁺ olay toplandı. Boyanmamış kontroller, tekli boyanmış kompanzasyon kontrolleri ile CD86 ve CD206 için floresan-eksi-bir kontrolleri dahil edildi. Her deneydeki tüm işlem gruplarına aynı kompanzasyon matrisi uygulandı. İleriye ve yana saçılma özellikleri temel alınarak döküntüler dışlandı ve ileriye saçılma alanı ile ileriye saçılma yüksekliği kullanılarak dubletler dışlandı. Canlılık boyası negatif hücreler tanımlandı, CD45⁺ hücreler kapılandı ve makrofajlar CD11b⁺F4/80⁺ hücreler olarak tanımlandı. Makrofaj kapısı içindeki CD86⁺ ve CD206⁺ hücreler, ilgili floresan-eksi-bir kontrollerinden belirlenen eşikler kullanılarak nicelendirildi. Tüm örneklere aynı kapılama hiyerarşisi uygulandı. Üç tekrarlı kuyucuğun her birinden birer boyalı hücre süspansiyonu hazırlandı ve üç kuyucuktan elde edilen yüzdelerin ortalaması alınarak her bağımsız deney için tek bir değer oluşturuldu. Deney, bağımsız olarak kültüre edilmiş hücreler kullanılarak üç kez tekrarlandı.
Güvenlik ve Atık İmhası
Tüm hücre kültürü prosedürleri, ox-LDL işlemleri ve hücre kaynaklı materyallerin işlenmesi, biyogüvenlik seviyesi 2 uygulamalarına uygun olarak Sınıf II biyolojik güvenlik kabininde gerçekleştirilmiştir. Tüm prosedürler boyunca laboratuvar önlüğü, eldiven ve göz koruyucu kullanılmıştır. Çalışma yüzeyleri ve ekipmanlar kullanımdan sonra dekontamine edilmiştir. Toksiteleri ve potansiyel karsinojenik etkileri nedeniyle formaldehit ve paraformaldehit uygun önlemler alınarak kullanılmıştır. Fiksatifler, Oil Red O çözeltileri, DMSO içeren çözeltiler ve floresan boyama çözeltileri, uygun kişisel koruyucu ekipman ve yeterli havalandırma kullanılarak işlenmiştir. Fiksatifler, boyama çözeltileri, DMSO içeren çözeltiler ve ox-LDL içeren kültür ortamları ayrı ayrı toplanmış ve kurumsal düzenlemelere uygun olarak tehlikeli kimyasal atık olarak bertaraf edilmiştir. Hücre içeren kültür ortamları, kontamine sarf malzemeleri ve akış sitometrisi örnekleri biyolojik atık olarak değerlendirilmiştir. Sıvı biyolojik atıklar, taze hazırlanmış %10 sodyum hipoklorit ile en az 30 dk boyunca dezenfekte edilmiş ve katı biyolojik atıklar, kurumsal biyogüvenlik prosedürlerine uygun olarak bertaraf edilmeden önce otoklavlanmıştır.
İstatistiksel Analiz
Tüm istatistiksel analizler GraphPad Prism istatistik yazılımı (sürüm 10.1.2) kullanılarak gerçekleştirilmiştir. Veriler ortalama ± standart sapma olarak sunulmuştur. n değeri, teknik tekrar kuyucuklarının, cihaz ölçümlerinin veya mikroskobik alanların sayısını değil, bağımsız deneylerin sayısını temsil etmektedir. Önceki bölümlerde açıklandığı üzere, her bir bağımsız deneyden elde edilen hiyerarşik olarak ortalaması alınmış değerler tüm istatistiksel analizler için kullanılmıştır. İki grup arasındaki karşılaştırmalar eşleştirilmemiş iki kuyruklu Student t-testi kullanılarak yapılmıştır. Üç veya daha fazla grup arasındaki karşılaştırmalar, tek yönlü varyans analizi ve ardından Tukey'nin çoklu karşılaştırma testi kullanılarak gerçekleştirilmiştir. Tüm istatistiksel testler çift yönlüdür ve p değerinin <0.05 olması istatistiksel olarak anlamlı kabul edilmiştir.
Sonuçlar
HQT'nin aktif bileşikleri ve hedefleri
TCM Sistem Farmakolojisi veri tabanından elde edilen verilerin taranması ve entegrasyonu yoluyla HQT'den toplam 137 aday biyoaktif bileşik tanımlanmıştır. Yinelenen kayıtlar çıkarıldıktan sonra, bu bileşiklerle ilişkili 391 benzersiz varsayılan hedef korunmuştur. Ardından, Şekil 1'de gösterildiği gibi, Cytoscape versiyon 3.7.2 kullanılarak bir HQT-bileşik-hedef etkileşim ağı oluşturulmuştur.
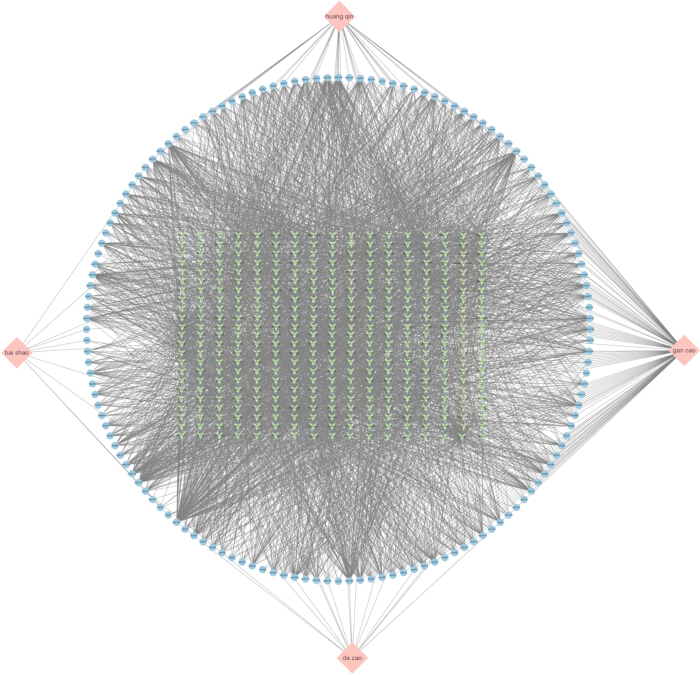
Şekil 1Huangqin Tang bileşenlerinin ve varsayılan hedeflerin öngörülen etkileşim ağı. Huangqin Tang'ın (HQT) dört bitkisel bileşeni, aday biyoaktif bileşenler ve varsayılan moleküler hedefler arasındaki öngörülen etkileşimleri gösteren ağ. Pembe elmas şeklindeki düğümler dört bitkisel bileşeni, mavi dairesel düğümler aday bileşikleri ve yeşil düğümler öngörülen hedefleri temsil etmektedir. Kenarlar, öngörülen bitki-bileşik veya bileşik-hedef ilişkilerini belirtmektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
AS'de HQT müdahalesi ile ilişkili hedeflerin belirlenmesi
GSE100927 veri setinden elde edilen gen ekspresyon verileri Gene Expression Omnibus veri tabanından alınmıştır. Diferansiyel ekspresyon analizi sonucunda, aterosklerotik arter örneklerinde kontrol arter örneklerine kıyasla 1.513 anlamlı düzeyde artmış (upregulated) ve 922 anlamlı düzeyde azalmış (downregulated) gen belirlenmiştir. İlgili volcano grafiği ve ısı haritası sırasıyla Şekil 2A ve Şekil 2B'de gösterilmiştir. AS ile ilişkili hedefler daha sonra GeneCards, Online Mendelian Inheritance in Man ve Comparative Toxicogenomics veri tabanlarından getirilmiştir. ≥1,163 olan bir ilgi puanı eşiği kullanılarak GeneCards'tan 600 potansiyel hedef elde edilirken, Şekil 2C'de özetlendiği üzere Online Mendelian Inheritance in Man ve Comparative Toxicogenomics veri tabanlarından sırasıyla 188 ve 64 hedef getirilmiştir. Veri tabanlarından türetilen hedeflerin diferansiyel ekspresyon gösteren genlerle entegrasyonu, en az iki veri kaynağı tarafından desteklenen 29 AS ilişkili hedef belirlemiştir. Bu hedefler daha sonra HQT'nin öngörülen hedefleriyle karşılaştırılmış ve HQT'nin AS üzerindeki etkilerini gerçekleştirebileceği aday hedefler olarak değerlendirilen 12 örtüşen hedef elde edilmiştir (Şekil 2D).
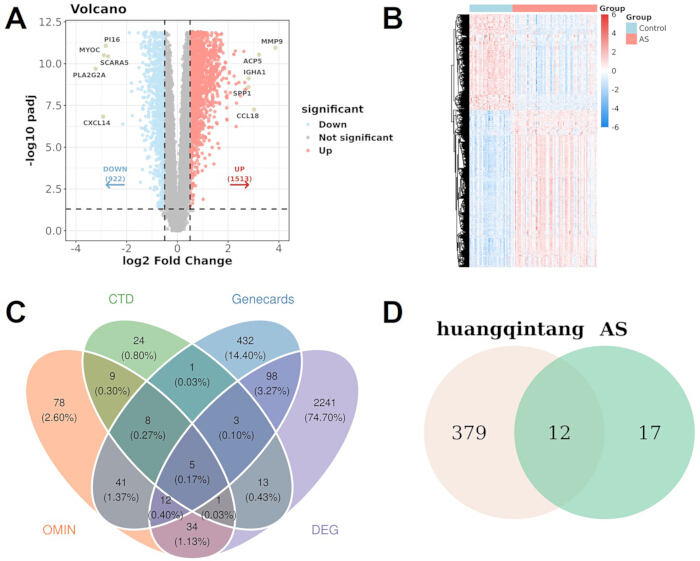
Şekil 2. Ateroskleroz ile ilişkili genlerin belirlenmesi ve öngörülen Huangqin Tang hedefleri ile örtüşmeleri. (A) GSE100927 veri setindeki ateroskleroz (AS) ve kontrol arteriyel örnekleri arasındaki farklı eksprese edilen genleri (DEG'ler) gösteren volkan grafiği. Kırmızı ve mavi noktalar sırasıyla yukarı regüle edilmiş ve aşağı regüle edilmiş genleri, gri noktalar ise anlamlı şekilde farklı eksprese edilmemiş genleri temsil etmektedir. (B) Kontrol ve AS örneklerindeki DEG'lerin ekspresyon paternlerini gösteren ısı haritası. (C) Comparative Toxicogenomics Database, GeneCards, Online Mendelian Inheritance in Man ve GSE100927 DEG analizinden elde edilen AS ile ilişkili genler arasındaki örtüşmeyi gösteren Venn diyagramı. (D) Öngörülen HQT hedefleri ile panel C'de en az iki kaynaktan elde edilen AS ile ilişkili hedefler arasındaki örtüşmeyi gösteren Venn diyagramı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Aday hedeflerin protein-protein etkileşim ağı ve fonksiyonel zenginleştirme analizleri
Örtüşen 12 hedefin etkileşimlerini ve biyolojik önemini karakterize etmek için, STRING veri tabanı kullanılarak bir protein-protein etkileşim (PPI) ağı oluşturulmuş, ardından Cytoscape ile görselleştirilmiş ve analiz edilmiştir. Ağ; NOS3, OLR1, ALOX5, SPP1, ESR1, IL10, TNF ve VCAM1 dahil olmak üzere lipid metabolizması, vasküler inflamasyon ve AS ile yakından ilişkili birçok hedef içeriyordu (Şekil 3A). Daha büyük ve daha koyu düğümler, ağ içinde topolojik önemi daha yüksek olan hedefleri temsil etmekte olup, bu proteinlerin HQT'nin AS'ye karşı potansiyel hedef ağında nispeten merkezi konumlar işgal edebileceğini düşündürmektedir. Bu hedeflerle ilişkili biyolojik fonksiyonları ve sinyal yolaklarını daha ayrıntılı karakterize etmek için Gen Ontolojisi (GO) ve Genler ve Genomlar Kyoto Ansiklopedisi (KEGG) zenginleştirme analizleri yapılmıştır. GO biyolojik süreç (BP) analizi, hedeflerin temel olarak steroid metabolik süreçleri, steroid hormonlarına ve besin seviyelerine verilen yanıtlar ve lipid homeostazının düzenlenmesi ile ilişkili olduğunu göstermiştir (Şekil 3B). GO hücresel bileşen (CC) analizi, membran salları ve ilgili membran mikrodomainlerinde baskın bir zenginleşmeye işaret ederken (Şekil 3C), GO moleküler fonksiyon (MF) analizi düşük yoğunluklu lipoprotein partikül reseptör aktivitesi, lipoprotein partikül reseptör aktivitesi, proteaz bağlanması, sitokin aktivitesi, nükleer reseptör aktivitesi, ligandla modüle edilen transkripsiyon faktörü aktivitesi, kargo reseptör aktivitesi, transkripsiyon koregülatör bağlanması, nükleer reseptör bağlanması ve integrin bağlanmasında zenginleşme ortaya çıkarmıştır (Şekil 3D). KEGG yolak analizi ayrıca Lipid ve Ateroskleroz yolağı, diyabetik komplikasyonlarda ileri glikasyon son ürünü-ileri glikasyon son ürünü reseptörü (AGE–RAGE) sinyal yolağı ve AMPK sinyal yolağı dahil olmak üzere lipid metabolizması, AS ve metabolik düzenleme ile ilgili yolaklarda anlamlı bir zenginleşme olduğunu göstermiştir (Şekil 3E). Toplu olarak, PPI ağı ve zenginleştirme analizleri, aday hedeflerin lipid homeostazı, inflamatuar sinyalizasyon ve enerji metabolizmasının düzenlenmesinde yer alabileceğini göstermiştir. Özellikle, AMPK sinyal yolağının zenginleşmesi, PF'nin AMPK ile ilgili etkilerinin in vitro ortamda daha sonra incelenmesi için bir temel sağlamıştır.
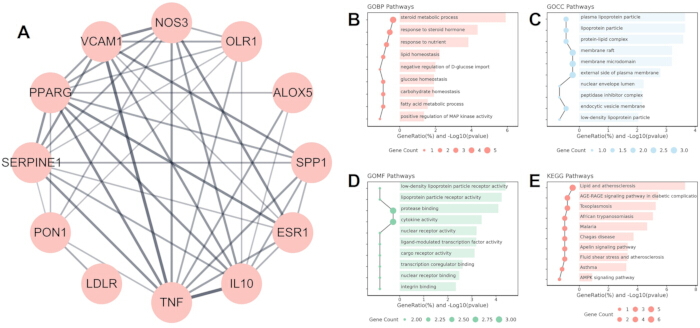
Şekil 3. Huangqin Tang ve ateroskleroz ortak hedeflerinin protein-protein etkileşim ağı ve fonksiyonel zenginleştirme analizi. (A) HQT ve AS arasındaki ortak hedeflerin protein-protein etkileşim ağı. Düğümler proteinleri, kenarlar ise öngörülen veya belgelenmiş protein-protein ilişkilerini temsil etmektedir. (B) Gen Ontolojisi biyolojik süreç zenginleştirme analizi. (C) Gen Ontolojisi hücresel bileşen zenginleştirme analizi. (D) Gen Ontolojisi moleküler fonksiyon zenginleştirme analizi. (E) Kyoto Gen ve Genom Ansiklopedisi yolak zenginleştirme analizi. Nokta boyutu zenginleşmiş gen sayısını, yatay çubuklar ise eksenlerde belirtildiği üzere ilgili zenginleştirme anlamlılığını ve gen oranını temsil etmektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
PF ve HQT, AMPK'yı aktive eder ve ox-LDL kaynaklı makrofaj disfonksiyonuna karşı koruyucu etkiler gösterir
Sonraki deneyler için uygun konsantrasyonları belirlemek amacıyla, öncelikle PF ve HQT'nin RAW264.7 hücre canlılığı üzerindeki etkileri değerlendirilmiştir. 1 ile 40 µM arasında değişen konsantrasyonlarda PF ile yapılan tedavi, işlem görmemiş kontrol grubuna kıyasla hücre canlılığını belirgin şekilde etkilememiştir (Şekil 4A). Benzer şekilde, 12,5 ile 200 µg/mL arasında değişen konsantrasyonlarda HQT, hücre canlılığında belirgin bir azalmaya yol açmamıştır (Şekil 4B). Bu sonuçlar, test edilen PF ve HQT konsantrasyonlarının RAW264.7 makrofajları tarafından genel olarak iyi tolere edildiğini göstermiştir. Ardından, PF ve HQT'nin AMPK aktivasyonu üzerindeki etkilerini değerlendirmek için Western blot analizi gerçekleştirilmiştir. Toplam AMPK ekspresyonu farklı tedavi grupları arasında nispeten stabil kalırken, PF, p-AMPK/AMPK oranını konsantrasyona bağlı olarak artırmıştır. HQT tedavisi de test edilen konsantrasyonlarda AMPK fosforilasyonunu artırmıştır (Şekil 4C). Hücre canlılığının korunması ve gözlemlenen AMPK aktivasyonuna dayanarak, sonraki karşılaştırmalı deneyler için 20 µM PF ve 100 µg/mL HQT seçilmiştir. Oil Red O boyaması, ox-LDL maruziyetinin RAW264.7 hücrelerinde hücre içi lipid birikimini belirgin şekilde artırdığını göstermiştir. PF veya HQT ile yapılan tedavi, ox-LDL grubuna kıyasla Oil Red O pozitif alanını anlamlı düzeyde azaltmıştır (Şekil 4D). Paralel olarak, ox-LDL maruziyeti hem ApoA-I aracılı hem de HDL aracılı kolesterol eflluksini bozmuştur. PF tedavisi kolesterol eflluksinin her iki formunu da anlamlı şekilde geri döndürmüş ve HQT, hücresel kolesterol dışa aktarımında benzer bir iyileşme sağlamıştır (Şekil 4E,F). ox-LDL maruziyeti ayrıca pro-inflamatuar sitokinler olan TNF-α, IL-6 ve IL-1β salınımını belirgin şekilde artırmıştır. PF ile yapılan tedavi, kültür süpernatantındaki her üç sitokinin konsantrasyonunu anlamlı düzeyde azaltmıştır. HQT tedavisi de benzer şekilde ox-LDL kaynaklı sitokin salınımını hafifletmiştir (Şekil 4G). Toplu olarak bu sonuçlar; PF'nin AMPK aktivasyonu, azalmış lipid birikimi, artmış kolesterol eflluksi ve inflamatuar yanıtların baskılanması dahil olmak üzere, tam HQT preparatıyla gözlemlenen birkaç koruyucu etkiyi yeniden ürettiğini göstermektedir. Bu bulgular, sonraki mekanistik incelemeler için PF'nin HQT'nin biyoaktif bir bileşeni olarak seçilmesini desteklemektedir.
PF'nin AMPK'nın termal stabilitesini etkileyip etkilemediğini değerlendirmek için bir hücresel termal kayma analizi (CETSA) gerçekleştirilmiştir. İnkübasyon sıcaklığı arttıkça, hem kontrol hem de PF ile işlem görmüş örneklerde saptanabilir AMPK ve fosforile AMPK seviyeleri kademeli olarak azalmıştır. Bununla birlikte, PF uygulaması, karşılık gelen kontrol örneklerine kıyasla çeşitli sıcaklıklarda AMPK ve p-AMPK tutulumunu artırmıştır (Şekil 4H,I). Bu bulgular, PF'nin AMPK'nın termal stabilitesini artırdığını göstermekte olup PF ile AMPK arasındaki potansiyel hedef etkileşimi ile uyumludur. Bu sonuçlara dayanarak, sonraki deneylerde AMPK'nın farmakolojik veya genetik inhibisyonunun, ox-LDL ile işlem görmüş makrofajlarda PF'nin koruyucu etkilerini hafifletip hafifletmediği araştırılmıştır.
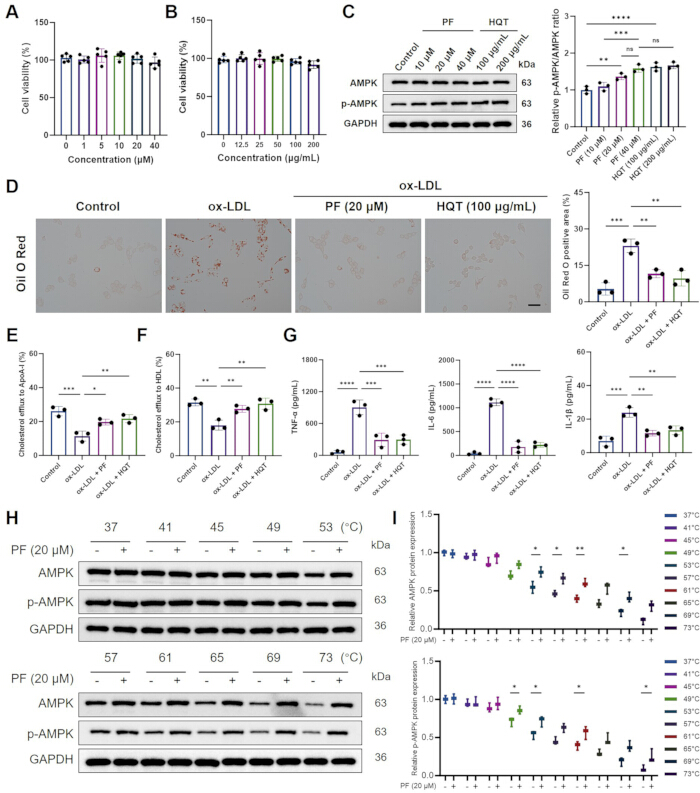
Şekil 4. Paeoniflorin ve Huangqin Tang, AMPK'yi aktive eder ve okside düşük yoğunluklu lipoprotein kaynaklı makrofaj disfonksiyonunu hafifletir. (A) Belirtilen konsantrasyonlarda paeoniflorin (PF; n = 5) tedavisi sonrası RAW264.7 hücre canlılığı. (B) Belirtilen konsantrasyonlarda HQT ekstresi tedavisi sonrası hücre canlılığı (n = 5). (C) PF veya HQT tedavisi sonrası AMPK ve fosforile AMPK'nin temsili western blot görüntüleri ve p-AMPK/AMPK oranının kantifikasyonu (n = 3). Yükleme kontrolü olarak GAPDH kullanılmıştır. (D) Temsili Oil Red O boyama görüntüleri ve hücre içi lipid birikiminin kantifikasyonu (n = 3). Ölçek çubuğu = 100 µm. (E) Apolipoprotein A-I aracılı kolesterol efluksu (n = 3). (F) Yüksek yoğunluklu lipoprotein aracılı kolesterol efluksu (n = 3). (G) ELISA ile ölçülen kültür süpernatantlarındaki TNF-α, IL-6 ve IL-1β konsantrasyonları (n = 3). (H) PF varlığında veya yokluğunda belirtilen sıcaklıklarda inkübasyon sonrası AMPK ve p-AMPK'nın temsili hücresel termal kayma analizi blotları. Yükleme kontrolü olarak GAPDH kullanılmıştır. (I) AMPK ve p-AMPK'nın termal stabilitesinin kantifikasyonu (n = 3). Veriler ortalama ± SD olarak sunulmuştur. İstatistiksel anlamlılık *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001 olarak belirtilmiştir. Yatay çubuklar test edilen ikili karşılaştırmaları tanımlar. Panel C'de belirtilen karşılaştırmalar Kontrol ile PF (20 µM), PF (10 µM) ile PF (40 µM), PF (20 µM) ile PF (40 µM), Kontrol ile HQT (100 µg/mL) ve PF (40 µM) ile HQT (200 µg/mL) arasındaydı. D–G panellerinde belirtilen karşılaştırmalar Kontrol ile ox-LDL, ox-LDL ile ox-LDL + PF ve ox-LDL ile ox-LDL + HQT arasındaydı. Panel I'de, araç ve PF ile tedavi edilmiş örnekler, yatay bir çubukla belirtilen her sıcaklıkta karşılaştırılmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
PF, ox-LDL ile işlem görmüş RAW264.7 hücrelerinde lipid birikimini ve inflamatuar sitokin salınımını azaltır ve hücre içi ATP'yi geri kazandırır
Oil Red O boyaması, kontrol grubuna kıyasla çok sayıda yoğun boyanmış lipid damlacığıyla kanıtlandığı üzere, ox-LDL uygulamasının RAW264.7 hücrelerinde belirgin hücre içi lipid birikimine ve köpük hücre oluşumuna yol açtığını göstermiştir (Şekil 5A,B). PF uygulaması, ox-LDL grubuna kıyasla lipid damlacıklarının hem sayısını hem de boyalı alanını önemli ölçüde azaltmıştır. Lipid birikimindeki bu iyileşmeyle uyumlu olarak, PF aynı zamanda ox-LDL tarafından indüklenen inflamatuar yanıtı da hafifletmiştir. Kültür süpernatantlarındaki TNF-α, IL-6 ve IL-1β seviyeleri ox-LDL maruziyeti sonrası önemli ölçüde artmış, ancak PF uygulamasıyla belirgin şekilde azalmıştır (Şekil 5C–E). Ek olarak, ox-LDL hücre içi ATP seviyelerini önemli ölçüde düşürürken, PF ATP içeriğini kısmen geri kazandırmış ve bu durum hücresel enerji durumunda bir iyileşme olduğunu göstermiştir (Şekil 5F). ox-LDL ayrıca ApoA-I aracılı ve HDL aracılı kolesterol efluksunu bozmuş, buna karşın PF, ox-LDL grubuna kıyasla her iki kolesterol efluks formunu da önemli ölçüde artırmıştır (Şekil 5G,H). AMPK inhibitörü dorsomorfin ile birlikte yapılan uygulama, PF'nin bu etkilerinin her birini kısmen hafifleterek, tek başına PF uygulamasına kıyasla artmış lipid birikimi ve pro-inflamatuar sitokin seviyelerinin yanı sıra azalmış ATP içeriği ve kolesterol efluksu ile sonuçlanmıştır (Şekil 5B–H). Toplu olarak bu bulgular, PF'nin RAW264.7 hücrelerinde ox-LDL tarafından indüklenen lipid yönetimi bozukluklarını, inflamatuar yanıtları ve hücresel enerji homeostazını hafiflettiğini ve AMPK sinyal yolağının bu koordineli koruyucu etkilere potansiyel olarak katkıda bulunduğunu göstermektedir.
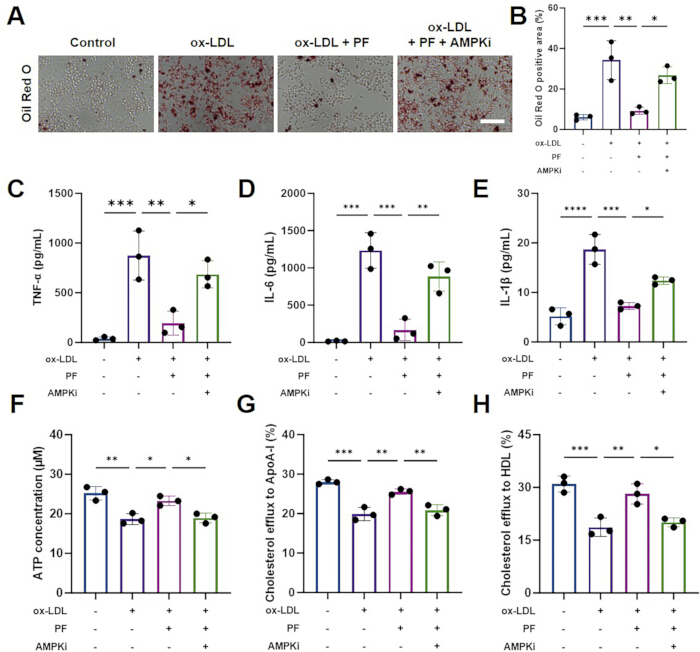
Şekil 5. AMPK inhibisyonu, paeoniflorin kaynaklı inflamasyon ve lipid birikimindeki azalmalar ile ATP içeriği ve kolesterol efluksundaki iyileşmeleri zayıflatmaktadır. (A) RAW264.7 hücrelerinin temsili Oil Red O boyama görüntüleri. Ölçek çubuğu = 100 µm. (B) Oil Red O pozitif alanın kantifikasyonu (n = 3). (C–E) Sırasıyla, ELISA ile ölçülen kültür süpernatantlarındaki TNF-α, IL-6 ve IL-1β konsantrasyonları (n = 3). (F) Hücre içi ATP konsantrasyonu (n = 3). (G) Apolipoprotein A-I aracılı kolesterol efluksu (n = 3). (H) Yüksek yoğunluklu lipoprotein aracılı kolesterol efluksu (n = 3). AMPKi, AMPK inhibitörü dorsomorphini ifade eder. Veriler, üç bağımsız deneyin ortalama ± SD değerleri olarak sunulmuştur. İstatistiksel anlamlılık *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001 olarak belirtilmiştir. Yatay çubuklar, test edilen ikili karşılaştırmaları tanımlar. B–H panellerinde belirtilen karşılaştırmalar Kontrol ile ox-LDL, ox-LDL ile ox-LDL + PF ve ox-LDL + PF ile ox-LDL + PF + AMPKi arasındadır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
PF, ox-LDL kaynaklı mitokondriyal disfonksiyonu, oksidatif stresi ve apoptozu hafifletir
TUNEL boyaması, ox-LDL'nin RAW264.7 hücrelerinde TUNEL floresansını belirgin şekilde artırdığını ve bunun artmış apoptoza işaret ettiğini, PF uygulamasının ise ox-LDL tarafından indüklenen TUNEL floresansını anlamlı düzeyde azalttığını göstermiştir. AMPK inhibitörü dorsomorfine ile birlikte yapılan uygulama, PF'nin anti-apoptotik etkisini kısmen tersine çevirmiştir (Şekil 6A,B). Tutarlı bir şekilde, artmış DCFH-DA floresansıyla belirtildiği üzere, ox-LDL hücre içi ROS seviyelerini belirgin şekilde artırırken, PF ROS birikimini anlamlı düzeyde azaltmıştır; bu antioksidan etki dorsomorfine tarafından kısmen tersine çevrilmiştir (Şekil 6C,D). JC-1 boyaması, ox-LDL uygulamasının kırmızı JC-1 agregat floresansını azalttığını ve yeşil JC-1 monomer floresansını artırdığını, bunun sonucunda mitokondriyal membran depolarizasyonunun göstergesi olan yeşil-kırmızı floresans oranının anlamlı şekilde arttığını göstermiştir. PF uygulaması yeşil-kırmızı floresans oranını belirgin şekilde azaltırken, dorsomorfine ile birlikte yapılan uygulama bu etkiyi kısmen tersine çevirmiştir (Şekil 6E,F). Topluca değerlendirildiğinde bu bulgular, PF'nin RAW264.7 hücrelerinde ox-LDL ile indüklenen mitokondriyal membran depolarizasyonunu, aşırı ROS üretimini ve apoptozu hafiflettiğini ve AMPK sinyal yolunun bu koruyucu etkilere potansiyel olarak katkıda bulunduğunu göstermektedir.
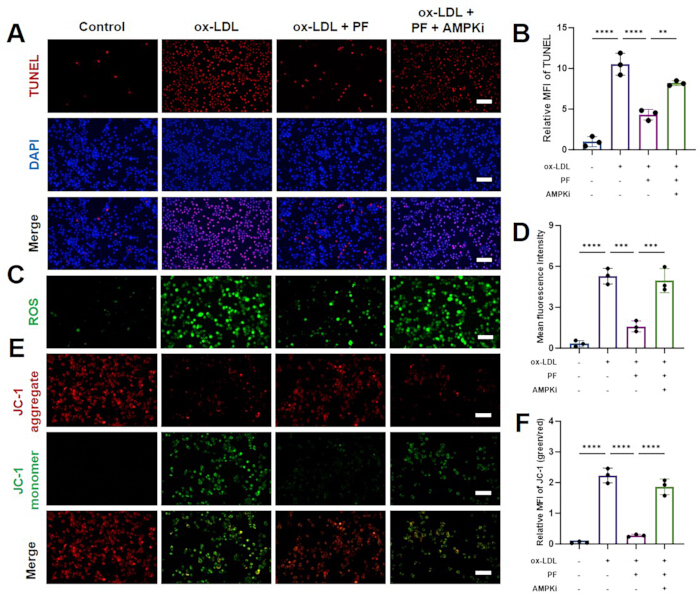
Şekil 6. AMPK inhibisyonu, paeoniflorin'in okside düşük yoğunluklu lipoprotein kaynaklı apoptoz, oksidatif stres ve mitokondriyal membran potansiyeli kaybı üzerindeki etkilerini azaltır. (A) RAW264.7 hücrelerinde apoptoz için TUNEL analizi (ölçek çubuğu = 100 µm) ve (B) İlgili kantitatif analiz (n = 3). (C) RAW264.7 hücrelerinin ROS boyaması (ölçek çubuğu = 100 μm) ve (D) Kantitatif sonuçlar (n = 3). (E) RAW264.7 hücrelerinin JC-1 boyaması (ölçek çubuğu = 100 μm) ve (F) İlgili kantitatif analiz (n = 3). Veriler, üç bağımsız deneyin ortalaması ± SD olarak sunulmuştur. İstatistiksel anlamlılık *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001 olarak belirtilmiştir. Yatay çubuklar, test edilen ikili karşılaştırmaları tanımlar. B, D ve F panellerinde belirtilen karşılaştırmalar Kontrol ile ox-LDL, ox-LDL ile ox-LDL + PF ve ox-LDL + PF ile ox-LDL + PF + AMPKi arasındadır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
AMPK inhibisyonu, ABCA1 ve apoptozla ilişkili proteinlerdeki PF kaynaklı değişiklikleri hafifletir
Western blot analizi, toplam AMPK protein bolluğunun tedavi grupları arasında nispeten stabil kaldığını, buna karşın ox-LDL'nin kontrol grubuna kıyasla p-AMPK/AMPK oranını anlamlı şekilde artırdığını ve ABCA1 ekspresyonunu azalttığını göstermiştir. PF tedavisi, ox-LDL grubuna kıyasla p-AMPK/AMPK oranını daha da artırmış ve ABCA1 ekspresyonunu geri kazandırmıştır. AMPK inhibitörü dorsomorphin ile birlikte yapılan tedavi, bu PF ile ilişkili değişiklikleri anlamlı şekilde hafifletmiş; ox-LDL + PF grubunda gözlemlenenlere göre daha düşük bir p-AMPK/AMPK oranı ve azalmış ABCA1 ekspresyonu ile sonuçlanmıştır (Şekil 7A,B). Apoptozla ilişkili proteinlerin analizi, ox-LDL'nin kontrol grubuna kıyasla toplam caspase-3 ekspresyonunu anlamlı şekilde artırdığını ve BCL-2/BAX oranını azalttığını göstermiştir. PF tedavisi, ox-LDL grubuna kıyasla toplam caspase-3 ekspresyonunu anlamlı şekilde azaltmış ve BCL-2/BAX oranını artırmıştır. Dorsomorphin eş tedavisi, bu PF ile ilişkili değişiklikleri tersine çevirmiş; ox-LDL + PF grubuna kıyasla artmış toplam caspase-3 ekspresyonu ve azalmış BCL-2/BAX oranı ile sonuçlanmıştır (Şekil 7C,D). Bu bulgular, AMPK inhibisyonunun, ox-LDL ile tedavi edilmiş RAW264.7 hücrelerinde PF'nin ABCA1 ekspresyonu ve apoptozla ilişkili protein profilleri üzerindeki etkilerini hafiflettiğini göstermektedir.
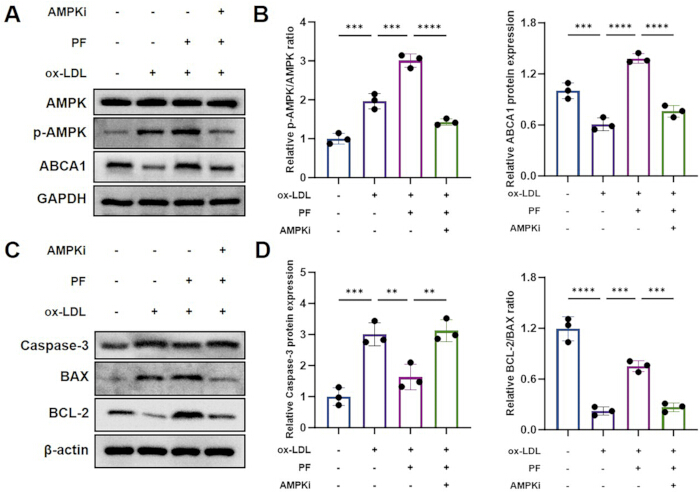
Şekil 7. AMPK inhibisyonu; paeoniflorin ile ilişkili AMPK fosforilasyonu, ABCA1 ekspresyonu ve apoptozla ilişkili proteinlerdeki değişimleri hafifletir. (A) AMPK, p-AMPK ve ATP-bağlayıcı kaset taşıyıcı A1 (ABCA1) için temsili western blot sonuçları. Yükleme kontrolü olarak GAPDH kullanılmıştır. (B) p-AMPK/AMPK oranının ve relatif ABCA1 protein ekspresyonunun kantifikasyonu (n = 3). (C) Toplam kaspaz-3, BAX ve BCL-2 için temsili western blot sonuçları. Yükleme kontrolü olarak β-Actin kullanılmıştır. (D) Relatif toplam kaspaz-3 ekspresyonunun ve BCL-2/BAX oranının kantifikasyonu (n = 3). AMPKi, AMPK inhibitörü dorsomorphin'i ifade eder. Veriler, üç bağımsız deneyin ortalaması ± SD olarak sunulmuştur. İstatistiksel anlamlılık *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001 olarak belirtilmiştir. Yatay çubuklar, test edilen ikili karşılaştırmaları tanımlar. B ve D panellerindeki her iki kantitatif sonuç için belirtilen karşılaştırmalar Kontrol ile ox-LDL, ox-LDL ile ox-LDL + PF ve ox-LDL + PF ile ox-LDL + PF + AMPKi şeklindedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
AMPK susturulması, ox-LDL ile işlem görmüş RAW264.7 hücrelerinde PF ile ilişkili nükleer LXRα bolluğundaki artışı ve NF-κB sinyalizasyonunun inhibisyonunu azaltır
PF'nin etkilerinde AMPK'nın rolünü daha ayrıntılı olarak belirlemek için, siRNA kullanılarak AMPK ekspresyonu susturulmuştur. si-AMPK ile transfekte edilen hücrelerde, si-NC grubuyla karşılaştırıldığında hem AMPK mRNA hem de protein seviyeleri önemli ölçüde azalmış olup, bu durum etkin knockdown işlemini doğrulamıştır (Şekil 8A,B). PF, ox-LDL ile işlem görmüş hücrelerde nükleer LXRα ekspresyonunu artırmış ve nükleer p-p65/p65 oranını azaltmıştır; buna karşın AMPK knockdown işlemi bu etkileri önemli ölçüde hafifletmiştir (Şekil 8C,D). Tutarlı bir şekilde, ox-LDL tüm hücre p-p65/p65 oranını belirgin şekilde artırmış, bu artış PF tarafından baskılanmış ancak AMPK knockdown işleminin ardından kısmen geri dönmüştür (Şekil 8E). PF ayrıca ox-LDL kaynaklı IκB-α ekspresyonundaki azalmayı ve p-IκB-α ekspresyonundaki artışı tersine çevirmiş, ancak bu etkiler si-AMPK tarafından hafifletilmiştir (Şekil 8F). Toplu olarak bu sonuçlar, AMPK'nın PF aracılı nükleer LXRα bolluğundaki artışa ve NF-κB sinyal yolunun inhibisyonuna katkıda bulunduğunu göstermektedir.
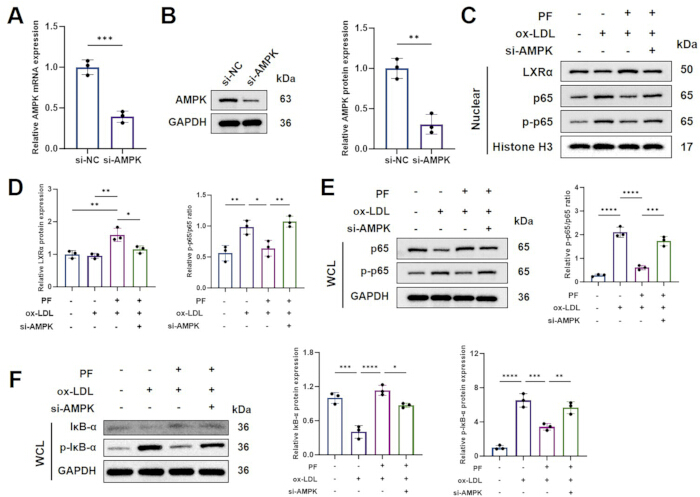
Şekil 8. AMPK susturulması, paeoniflorin kaynaklı nükleer LXRα bolluğundaki artışı ve NF-κB sinyalizasyonunun inhibisyonunu azaltır. (A) Negatif kontrol siRNA veya AMPK hedefli siRNA ile transfeksiyondan sonraki bağıl AMPK mRNA ekspresyonu (n = 3). (B) siRNA transfeksiyondan sonra AMPK protein ekspresyonunun temsili western blotu ve kantifikasyonu (n = 3). Yükleme kontrolü olarak GAPDH kullanılmıştır. (C) Nükleer LXRα, p65 ve p-p65'in temsili western blotları. Nükleer yükleme kontrolü olarak Histon H3 kullanılmıştır. (D) Bağıl nükleer LXRα ekspresyonunun ve nükleer p-p65/p65 oranının kantifikasyonu (n = 3). (E) Tüm hücre p65 ve p-p65'in temsili western blotları ve p-p65/p65 oranının kantifikasyonu (n = 3). Yükleme kontrolü olarak GAPDH kullanılmıştır. (F) Tüm hücre IκB-α ve p-IκB-α'nın temsili western blotları ve ilgili kantitatif analizler (n = 3). Yükleme kontrolü olarak GAPDH kullanılmıştır. Veriler, üç bağımsız deneyin ortalaması ± SD olarak sunulmuştur. İstatistiksel anlamlılık *P < 0.05, **P < 0.01, *** P < 0.001 ve **** P < 0.0001 olarak belirtilmiştir. Yatay çubuklar, test edilen ikili karşılaştırmaları tanımlar. A ve B panellerinde, si-NC ile si-AMPK karşılaştırılmıştır. D panelindeki nükleer LXRα ekspresyonu için belirtilen karşılaştırmalar Kontrol ile ox-LDL + PF, ox-LDL ile ox-LDL + PF ve ox-LDL + PF ile ox-LDL + PF + si-AMPK arasındadır. D panelindeki nükleer p-p65/p65 oranı ve E ve F panellerindeki kantitatif analizler için belirtilen karşılaştırmalar Kontrol ile ox-LDL, ox-LDL ile ox-LDL + PF ve ox-LDL + PF ile ox-LDL + PF + si-AMPK arasındadır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
AMPK susturulması, PF aracılı kolesterol eflluksini ve makrofaj fenotip modülasyonunu zayıflatır
NF-κB'nin farmakolojik inhibisyonunun PF ile ilişkili olanlara benzer fonksiyonel değişiklikler üretip üretmediğini belirlemek için ABCA1 ekspresyonu, kolesterol efluksu, lipid birikimi ve makrofaj fenotipik belirteçleri değerlendirilmiştir. PF, ox-LDL ile işlem görmüş hücrelerde ABCA1 ekspresyonunu restore etmiş ve ApoA-I aracılı ile HDL aracılı kolesterol efluksunu artırmış, buna karşın AMPK susturulması bu etkileri önemli ölçüde hafifletmiştir (Şekil 9A–C). Tutarlı bir şekilde, PF hücre içi lipid birikimini azaltmış, si-AMPK ise bu etkiyi kısmen tersine çevirmiştir (Şekil 9D,E). BAY 11-7082 ile tedavi, artan ABCA1 ekspresyonu ve kolesterol efluksu ile azalan hücre içi lipid birikimi dahil olmak üzere, PF tarafından indüklenenlere benzer değişiklikler üretmiştir (Şekil 9A–E). Akış sitometrisi analizi, Şekil 9F'de gösterilen kapılama stratejisi kullanılarak gerçekleştirilmiştir. Ox-LDL, CD86-pozitif makrofajların oranını belirgin şekilde artırmış, PF ise bu popülasyonu azaltmıştır; bu etki AMPK susturulması ile hafifletilmiştir (Şekil 9G,H). Buna karşın PF, CD206-pozitif makrofajların oranını artırmış ve bu durum si-AMPK tarafından kısmen tersine çevrilmiştir (Şekil 9I,J). BAY 11-7082 benzer şekilde CD86-pozitif makrofajların oranını azaltmış ve CD206-pozitif makrofajların oranını artırmıştır (Şekil 9G–J). Bu bulgular, AMPK'nın potansiyel olarak NF-κB sinyalizasyonunun düzenlenmesi yoluyla, PF'nin kolesterol homeostazı ve makrofaj fenotipik modülasyonu üzerindeki etkilerine katkıda bulunduğunu göstermektedir.
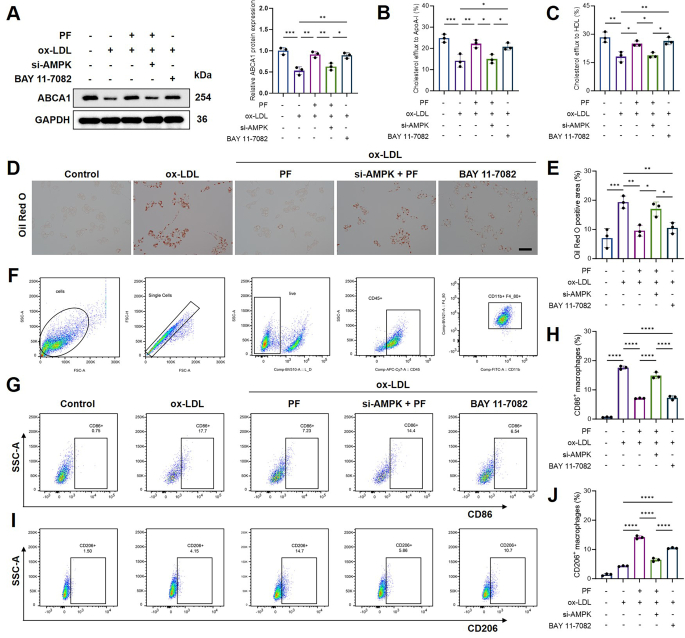
Şekil 9. AMPK susturma ve NF-κB inhibisyonu, paeoniflorin ile ilişkili kolesterol efluksunu, lipid birikimini ve makrofaj fenotipini modüle eder. (A) ABCA1 ekspresyonunun temsili western blot ve kantifikasyonu (n = 3). Yükleme kontrolü olarak GAPDH kullanılmıştır. (B) Apolipoprotein A-I aracılı kolesterol efluksu (n = 3). (C) Yüksek yoğunluklu lipoprotein aracılı kolesterol efluksu (n = 3). (D) Temsili Oil Red O boyama görüntüleri. Ölçek çubuğu = 100 µm. (E) Oil Red O-pozitif alanın kantifikasyonu (n = 3). (F) Hücrelerin, singletlerin, canlı CD45-pozitif hücrelerin ve CD11b-pozitif/F4/80-pozitif makrofajların tanımlanması için kullanılan ardışık akım sitometrisi kapılama stratejisi. (G) CD86-pozitif makrofajların temsili akım sitometrisi grafikleri. (H) CD86-pozitif makrofajların kantifikasyonu (n = 3). (I) CD206-pozitif makrofajların temsili akım sitometrisi grafikleri. (J) CD206-pozitif makrofajların kantifikasyonu (n = 3). NF-κB inhibitörü olarak BAY 11-7082 kullanılmıştır. Veriler, üç bağımsız deneyin ortalama ± SD değerleri olarak sunulmuştur. İstatistiksel anlamlılık *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001 olarak belirtilmiştir. Yatay çubuklar, test edilen ikili karşılaştırmaları tanımlar. A–C, E ve H panellerinde belirtilen karşılaştırmalar Kontrol ile ox-LDL, ox-LDL ile ox-LDL + PF, ox-LDL + PF ile ox-LDL + PF + si-AMPK, ox-LDL + PF + si-AMPK ile ox-LDL + BAY 11-7082 ve ox-LDL ile ox-LDL + BAY 11-7082 arasındaydı. J panelinde belirtilen karşılaştırmalar ox-LDL ile ox-LDL + PF, ox-LDL + PF ile ox-LDL + PF + si-AMPK, ox-LDL + PF + si-AMPK ile ox-LDL + BAY 11-7082 ve ox-LDL ile ox-LDL + BAY 11-7082 arasındaydı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Veri Erişilebilirliği:
Bu çalışmada analiz edilen ve kamuya açık olan mikroarray veri seti, Ulusal Biyoteknoloji Bilgi Merkezi Gen İfadesi Omnibus (GEO) üzerinden GSE100927 erişim numarası ile temin edilebilir. Bu çalışmada üretilen tüm ham ve işlenmiş veriler, ek dosyalar olarak bu makale ile birlikte sunulmuş olup yayınlandığında herhangi bir kısıtlama olmaksızın kamuya açık olacaktır. Ek Veri 1, Şekil 4–9'un temelini oluşturan sayısal kaynak verileri ve ilgili istatistiksel analizleri içermektedir. Ek Veri 2, orijinal kırpılmamış western blot ve CETSA görüntülerini içermektedir. Ek Veri 3, kantitatif analiz için kullanılan orijinal tam çözünürlüklü mikroskopi görüntülerini içermektedir. Ek Veri 4, ham akış sitometrisi FCS dosyalarını, kontrol dosyalarını, kompanzasyon bilgilerini, gating kayıtlarını ve FlowJo çalışma alanını içermektedir. Ek Veri 5; veri ön işleme, diferansiyel ekspresyon analizi, görselleştirme, hedef entegrasyonu ve zenginleştirme analizi dahil olmak üzere ağ farmakolojisi ve transkriptomik analizler için kullanılan eksiksiz R scriptlerini içermektedir.
Ek Veri 1. Kaynak sayısal veriler ve istatistiksel analizler. Kaynak sayısal verileri ve bunlara dayalı ilgili istatistiksel analizleri içeren Excel çalışma kitabı Şekil 4–9şekillere göre ayrı çalışma sayfalarına organize edilmiştir. Çalışma kitabı, grafik oluşturma ve istatistiksel karşılaştırmalar için kullanılan nicel verileri içermektedir.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Veri 2. Kırpılmamış orijinal western blot ve CETSA görüntüleri. Makalede sunulan tüm western blot ve CETSA deneylerine ait kırpılmamış orijinal görüntüleri içeren, görüntü hazırlama ve nicelleştirme için kullanılan kaynak verileri belgelemek amacıyla şekil ve panele göre düzenlenmiş PDF dosyası.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Veri 3. Orijinal tam çözünürlüklü mikroskopi görüntüleri. Nitel sunum ve nicel analizler için kullanılan, makalede gösterilen şekillere karşılık gelen temsili görüntüler de dahil olmak üzere orijinal tam çözünürlüklü mikroskopi görüntülerini içeren PDF dosyası.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Veri 4. Ham akış sitometrisi verileri. Ham FCS dosyaları, kontrol dosyaları, kompanzasyon bilgileri, gating kayıtları ve akış sitometrisi analizleri için kullanılan FlowJo çalışma alanı. Tüm veri setine Microsoft OneDrive üzerinden erişilebilir: https://1drv.ms/f/c/8d1d81159583ae0f/IgA367Hi90R5CfjDR5uwoGARiUYsefUFv0_OKSUWT5jGY?e=caEpxo. Yedek olarak akış sitometrisi analizlerinin bir PDF özeti de sağlanmıştır.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Veri 5. Ağ farmakolojisi ve transkriptomik analizler için R scriptleri. Ağ farmakolojisi ve transkriptomik analizler için kullanılan eksiksiz hesaplama iş akışını içeren iki R script dosyası. Scriptler; paket yükleme ve kurulumu, veri ön işleme, diferansiyel ekspresyon analizi, hedef entegrasyonu, fonksiyonel zenginleştirme analizleri, veri görselleştirme ve raporlanan analitik sonuçların oluşturulmasını içermektedir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Makrofaj köpük hücre oluşumu, yalnızca modifiye lipoproteinlerin aşırı alımıyla değil, aynı zamanda bozulmuş kolesterol ihracı ve kalıcı inflamatuar aktivasyonla da tetiklenir. Mevcut çalışma, PF'nin lipid yönetimi, inflamatuar yanıtlar ve hücresel stresle eş zamanlı değişikliklerle ilişkilendirildiği potansiyel bir mekanizma olarak AMPK ile ilişkili sinyal yolunu tanımlayarak bu süreçleri birbirine bağlamaktadır; bu değişikliklerin birkaçı AMPK inhibisyonu veya susturulması ile hafifletilmiştir. PF ve HQT'nin genel olarak tutarlı etkileri, PF'nin formülün biyolojik olarak ilgili bir bileşeni olduğunu göstermektedir. Bununla birlikte, HQT toplamsal veya sinerjik olarak etki edebilecek birden fazla aktif bileşik içerdiğinden, bu bulgular PF'yi HQT'nin temel aktif maddesi olarak belirlemekten ziyade, temsili bir bileşen olarak desteklemektedir.
AMPK, makrofajların inflamatuar aktivasyonunu kısıtlayabilen metabolik bir kontrol noktası olarak işlev görür. Önceki çalışmalar, AMPK aktivasyonunun IκB degradasyonunu sınırladığını, inflamatuar mediyatör üretimini azalttığını ve daha az inflamatuar bir makrofaj fenotipini desteklediğini göstermiştir. AMPK aktivasyonunun, PP2A/NF-κB/LOX-1 yolağının düzenlenmesi aracılığıyla ox-LDL alımını baskıladığı da bildirilmiştir26,27. Mevcut farmakolojik ve genetik bulgular, AMPK'nın kolesterol dışa aktarımı ve inflamatuar sinyal iletimi üzerindeki birçok PF ile ilişkili etki için gerekli olduğunu göstererek bu gözlemleri genişletmektedir. Bu nedenle, AMPK sadece PF'ye karşı izole bir yanıtı aracılamakla kalmayıp, makrofajlardaki metabolik ve immünomodülatör etkilerini entegre ediyor olabilir. AMPK, LXRα ve ABCA1 arasındaki ilişki, kolesterol efluksunda gözlemlenen iyileşme için makul bir açıklama sunmaktadır. LXRα, ABCA1'in merkezi bir transkripsiyonel düzenleyicisidir ve LXRα–ABCA1 yolağının aktivasyonu, fazla kolesterolün makrofajlardan uzaklaştırılmasını teşvik eder28. İnsan makrofajları üzerinde yapılan çalışmalar, AMPK'nın LXRα'yı ve onun alt akışındaki kolesterol taşıyıcılarını düzenleyebileceğini, LXR ile stimüle edilen kolesterol efluksunun ise ABCA1'e güçlü bir şekilde bağımlı olduğunu daha da ortaya koymuştur29,30. Mevcut çalışmada, AMPK susturulması, PF'nin nükleer LXRα bolluğu, ABCA1 ekspresyonu ve ApoA-I aracılı ile HDL aracılı kolesterol efluksu üzerindeki etkilerini zayıflatmıştır. Bu gözlemler, LXRα/ABCA1 ile ilgili düzenlemenin AMPK'nın alt akışında gerçekleştiği bir modelle tutarlıdır. Ancak, ABCA1 doğrudan susturulmadığı için, veriler bir AMPK–LXRα–ABCA1 nedensel dizilimini desteklemekte ancak bunu tamamen kanıtlamamaktadır.
Bulgular ayrıca, kolesterol homeostazı ile enflamatuar sinyalleme arasında karşılıklı bir düzenleme olduğunu da göstermektedir. Enflamasyon, ABCA1 ekspresyonunu ve kolesterol eflluksini baskılayarak makrofajlarda lipid retansiyonunu kolaylaştırabilir. Aksine, NF-κB inhibisyonunun, enflamatuar makrofajlarda ABCA1 ekspresyonunu ve kolesterol ihracını geri kazandırdığı gösterilmiştir31. Mevcut çalışmada PF ve BAY 11-7082 tarafından oluşturulan benzer etkiler bu çapraz etkileşimi desteklemektedir: NF-κB sinyallemesinin baskılanmasına, artmış ABCA1 ekspresyonu, gelişmiş kolesterol eflluksi ve azalmış lipid akümülasyonu eşlik etmiştir. AMPK susturulması, PF'nin hem metabolik hem de enflamatuar etkilerini zayıflatmış olup, bu durum AMPK'nın bu iki birbirine bağlı süreci bağımsız olarak düzenlemek yerine koordine edebileceğini düşündürmektedir. Önceki çalışmalar, PF'nin NF-κB sinyallemesini inhibe ederek pro-enflamatuar makrofaj aktivasyonunu baskılayabildiğini ortaya koymuştur. PF içeren tedavilerin ayrıca ABCA1/ABCG1 ile ilişkili kolesterol ihracını artırdığı ve köpük hücre oluşumunu azalttığı bildirilmiştir32,33. Mevcut çalışma, daha önce tanımlanmış olan bu lipid düzenleyici ve anti-enflamatuar özellikleri AMPK ile ilişkilendirerek ek bir mekanistik bağlam sunmaktadır. Dahası, tam HQT preparatı ile yapılan karşılaştırma, mevcut çalışmayı PF'yi tek başına inceleyen çalışmalardan ayırmakta ve seçilen makrofaj assay'lerinde PF ve HQT'nin kısmen örtüşen etkiler yarattığını göstermektedir.
AMPK ile ilişkili mekanizmalar, PF'nin oksidatif stres ve mitokondriyal bütünlük üzerindeki etkilerine katkıda bulunabilir. Ox-LDL ile indüklenen lipid yüklemesi, makrofajlar üzerinde önemli bir enerjik ve oksidatif stres oluşturarak mitokondriyal depolarizasyonu ve apoptozu teşvik edebilir. PF tedavisi sonrası gözlemlenen ATP seviyelerinin, mitokondriyal membran potansiyelinin ve antioksidan kapasitenin eş zamanlı olarak geri kazanılması, bu durumun birbiriyle ilgisiz birkaç etkiden ziyade koordineli bir metabolik koruma ile uyumlu olduğunu göstermektedir. Benzer şekilde, makrofajlar üzerinde yapılan önceki bir çalışma, PF'nin mitokondriyal kalite kontrolünün düzenlenmesi yoluyla ROS birikimini azalttığını, mitokondriyal membran potansiyelini koruduğunu ve inflamatuar fenotipi değiştirdiğini bulmuştur34. AMPK'nın spesifik alt efektörleri henüz belirlenmemiş olsa da, bu bulgular mitokondriyal fonksiyonun korunmasının PF'nin anti-inflamatuar ve anti-apoptotik etkilerine katkıda bulunabileceğini düşündürmektedir. CETSA bulguları, PF ile AMPK arasındaki bağlantıyı destekleyen ek bir kanıt sunmaktadır. CETSA, protein termal stabilitesindeki ligandla ilişkili değişiklikleri tespit ederek hücre içi ilaç-hedef etkileşimini değerlendirmek için geliştirilmiştir35. Lizat tabanlı CETSA sonuçları, hücre lizatlarında AMPK'nın veya AMPK içeren bir protein kompleksinin PF ile ilişkili stabilizasyonu ile uyumludur. Ancak, termal stabilizasyon tek başına, doğrudan ligand bağlanmasını; değişmiş fosforilasyon, protein etkileşimleri veya hücresel bağlamdan kaynaklanan dolaylı stabilizasyondan ayıramaz. Doğrudan PF–AMPK bağlanmasının, saflaştırılmış protein veya diğer biyofiziksel yaklaşımlar kullanılarak doğrulanması gerekmektedir.
PF ayrıca CD86-pozitif hücrelerin oranını azaltmış ve CD206-pozitif hücrelerin oranını artırmıştır; bu değişimler AMPK susturulmasıyla hafiflemiştir. Bu bulgular, PF'nin makrofaj inflamatuar fenotipini değiştirebileceğine dair önceki kanıtlarla tutarlıdır32,34. Bununla birlikte, makrofaj aktivasyonu, iki sabit M1 ve M2 durumu yerine çok boyutlu bir spektrum boyunca gerçekleşir36. Bu nedenle CD86 ve CD206, tam bir M1'den M2'ye dönüşümün kesin kanıtlarından ziyade, sırasıyla inflamatuar ve onarıcı programlarla ilişkili fenotipik belirteçler olarak yorumlanmalıdır. Makrofaj fenotipini daha kapsamlı bir şekilde karakterize etmek için ek transkripsiyonel, sekretuar ve fonksiyonel belirteçler gerekecektir. Bazı kısıtlamalar kabul edilmelidir. Birincisi, deneyler RAW264.7 hücreleri ile sınırlandırılmıştır ve bulguların primer veya insan makrofajlarında ve in vivo AS modellerinde doğrulanması gerekmektedir. İkincisi, seçilen PF konsantrasyonu sitotoksik olmamasına ve AMPK fosforilasyonunu artırmasına rağmen, temel fonksiyonel sonuçlar için tam bir konsantrasyon-yanıt ilişkisi kurulmamıştır. Üçüncüsü, ABCA1'e özgü fonksiyon kaybı ve kurtarma deneyleri gerçekleştirilmemiştir; bu nedenle önerilen AMPK–LXRα–ABCA1 yolu, tamamen kanıtlanmış doğrusal bir kaskaddan ziyade desteklenen mekanistik bir model olarak değerlendirilmelidir. Dördüncüsü, PF ve HQT farklı konsantrasyon birimleri kullanılarak karşılaştırılmıştır ve HQT preparatının PF içeriği ile fitokimyasal tutarlılığı nicel olarak değerlendirilmemiştir. Son olarak, CETSA sonuçları potansiyel hücre içi hedef etkileşimine işaret etmektedir ancak doğrudan moleküler bağlanmayı bağımsız olarak kanıtlamamaktadır.
Sonuç olarak, mevcut bulgular PF'nin; kolesterol ihracını, enflamatuar sinyallemeyi, enerji metabolizmasını ve mitokondriyal homeostazı koordine ederek ox-LDL kaynaklı makrofaj disfonksiyonunu hafiflettiğini göstermektedir. Farmakolojik inhibisyon ve siRNA aracılı AMPK susturulması, PF aracılı koruyucu etkilerin bir kısmını zayıflatmış ve nükleer LXRα bolluğu, ABCA1 ekspresyonu, kolesterol efluksu ve NF-κB sinyallemesindeki değişikliklerle birlikte seyretmiştir. PF, test edilen koşullar altında HQT tedavisi sonrası gözlemlenen etkilerin birçoğu ile örtüşen makrofaj koruyucu etkiler sergilemiştir. PF'nin HQT'nin genel aktivitesine olan katkısı henüz belirlenememiştir.
Açıklamalar
Çıkar Çatışması:
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Hiçbiri.
Yazar Katkıları:
Yunjie Zeng: Kavramsal Tasarım, Metodoloji, Araştırma, Biçimsel Analiz, Veri Yönetimi, Görselleştirme ve Yazma – orijinal taslak
Huaying Wang: Yöntemoloji, Araştırma, Resmi analiz, Doğrulama, Veri yönetimi, Görselleştirme ve Yazma – orijinal taslak
Dong Liu: Yöntemoloji, Araştırma ve Doğrulama.
Yunlu Jiang: Soruşturma, Veri yönetimi ve Biçimsel analiz.
Pengcheng Ren: Soruşturma, Biçimsel analiz ve Görselleştirme.
Wenxin Song: Kaynaklar, Doğrulama ve Yazım – inceleme & düzenleme
Guopeng Huang: Kavramsal tasarım, Yöntem, Denetim, Proje yönetimi, Fon sağlama ve Yazma – inceleme & düzenleme
Xiaojiao He: Kavramsal tasarım, Kaynaklar, Denetim, Proje yönetimi, Fon sağlama ve Yazma – inceleme & düzenleme
Yunjie Zeng ve Huaying Wang bu çalışmaya eşit şekilde katkıda bulunmuş ve birlikte ilk yazarlıktadır. Guopeng Huang ve Xiaojiao He ortak sorumlu yazarlardır. Tüm yazarlar nihai metni incelemiş ve onaylamıştır.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Kemilüminesans görüntüleme sistemi | Thermo Fisher Scientific | iBright Imaging System | |
| Akış sitometresi | BD Biosciences | FACSCanto II | |
| Ters floresan mikroskobu | Olympus | IX73 | |
| Mikroplaka okuyucu | PerkinElmer | VICTOR X3 | |
| Real-time PCR sistemi | Bio-Rad | CFX Opus 96 | |
| Spektrofotometre | Thermo Fisher Scientific | NanoDrop 8000 |
Kaynaklar
- Zysman M et al. Risk of cardiovascular events according to the severity of an exacerbation of chronic obstructive pulmonary disease. Eur J Prev Cardiol. 2025;32(15):1436-1444. doi:10.1093/eurjpc/zwaf086.
- Zvintzou E et al. Context-dependent effects of apolipoprotein A2 on lipid metabolism and atherogenesis. FASEB J. 2026;40(12):e72032. doi:10.1096/fj.202600765R.
- Zuriaga MA et al. Colchicine prevents accelerated atherosclerosis in TET2-mutant clonal haematopoiesis. Eur Heart J. 2024;45(43):4601-4615. doi:10.1093/eurheartj/ehae546.
- Zhang Y et al. Effects and mechanisms of Zhizi Chuanxiong herb pair against atherosclerosis: an integration of network pharmacology, molecular docking, and experimental validation. Chin Med. 2024;19(1):8. doi:10.1186/s13020-023-00874-x.
- Zysset D et al. TREM-1 links dyslipidemia to inflammation and lipid deposition in atherosclerosis. Nat Commun. 2016;7:13151. doi:10.1038/ncomms13151.
- Zou Z et al. Recent advances in nanozymes for the treatment of atherosclerosis. Int J Nanomedicine. 2025;20:9447-9472. doi:10.2147/IJN.S540010.
- Zoubdane N et al. High tyrosol and hydroxytyrosol intake reduces arterial inflammation and atherosclerotic lesion microcalcification in healthy older populations. Antioxidants (Basel). 2024;13(1):130. doi:10.3390/antiox13010130.
- Zhong T et al. Adaptation of endothelial cells to shear stress under atheroprone conditions by modulating internalization of vascular endothelial cadherin and vinculin. Ann Transl Med. 2020;8(21):1423. doi:10.21037/atm-20-3426.
- Zhuo S et al. Inflammatory corpuscle AIM2 facilitates macrophage foam cell formation by inhibiting cholesterol efflux protein ABCA1. Sci Rep. 2024;14(1):10782. doi:10.1038/s41598-024-61495-4.
- Zheng H et al. Lp-PLA2 silencing protects against ox-LDL-induced oxidative stress and cell apoptosis via Akt/mTOR signaling pathway in human THP-1 macrophages. Biochem Biophys Res Commun. 2016;477(4):1017-1023. doi:10.1016/j.bbrc.2016.07.022.
- Zhou Y et al. Asperlin inhibits LPS-evoked foam cell formation and prevents atherosclerosis in ApoE(-/-) mice. Mar Drugs. 2017;15(11):358. doi:10.3390/md15110358.
- Zhong Y, Liu C, Feng J, Li JF, Fan ZC. Curcumin affects ox-LDL-induced IL-6, TNF-α, MCP-1 secretion and cholesterol efflux in THP-1 cells by suppressing the TLR4/NF-κB/miR33a signaling pathway. Exp Ther Med. 2020;20(3):1856-1870. doi:10.3892/etm.2020.8915.
- Zhu C et al. TRIM64 promotes ox-LDL-induced foam cell formation, pyroptosis, and inflammation in THP-1-derived macrophages by activating a feedback loop with NF-κB via IκBα ubiquitination. Cell Biol Toxicol. 2023;39(3):607-620. doi:10.1007/s10565-022-09768-4.
- Zhang G et al. OxLDL/β2GPI/anti-β2GPI Ab complex induces inflammatory activation via the TLR4/NF-κB pathway in HUVECs. Mol Med Rep. 2021;23(2):148. doi:10.3892/mmr.2020.11787.
- Zu YX et al. Jiang Gui Fang activated interscapular brown adipose tissue and induced epididymal white adipose tissue browning through the PPARγ/SIRT1-PGC1α pathway. J Ethnopharmacol. 2020;248:112271. doi:10.1016/j.jep.2019.112271.
- Zu X et al. Antidepressant-like effect of Bacopaside I in mice exposed to chronic unpredictable mild stress by modulating the hypothalamic-pituitary-adrenal axis function and activating BDNF signaling pathway. Neurochem Res. 2017;42(11):3233-3244. doi:10.1007/s11064-017-2360-3.
- Zong K et al. Explorating the mechanism of Huangqin Tang against skin lipid accumulation through network pharmacology and experimental validation. J Ethnopharmacol. 2023;313:116581. doi:10.1016/j.jep.2023.116581.
- Zou Y et al. Huangqin Tang ameliorates dextran sodium sulphate-induced colitis by regulating intestinal epithelial cell homeostasis, inflammation and immune response. Sci Rep. 2016;6:39299. doi:10.1038/srep39299.
- Zou Y et al. Huangqin Tang ameliorates TNBS-induced colitis by regulating effector and regulatory CD4(+) T cells. Biomed Res Int. 2015;2015:102021. doi:10.1155/2015/102021.
- Wang D et al. Huangqin tang alleviates colitis-associated colorectal cancer via amino acid homeostasis and PI3K/AKT/mTOR pathway modulation. J Ethnopharmacol. 2024;334:118597. doi:10.1016/j.jep.2024.118597.
- Zhu X, Zhou Y, Cai W, Sun H, Qiu L. Salusin-β mediates high glucose-induced endothelial injury via disruption of AMPK signaling pathway. Biochem Biophys Res Commun. 2017;491(2):515-521. doi:10.1016/j.bbrc.2017.06.126.
- Zhu J, Chen H, Guo J, Zha C, Lu D. Sodium tanshinone IIA sulfonate inhibits vascular endothelial cell pyroptosis via the AMPK signaling pathway in atherosclerosis. J Inflamm Res. 2022;15:6293-6306. doi:10.2147/JIR.S386470.
- Kim J et al. Inhibition of Toll-like receptors alters macrophage cholesterol efflux and foam cell formation. Int J Mol Sci. 2024;25(12):6808. doi:10.3390/ijms25126808.
- Zuo J, Guo S, Qin X. Bisdemethoxycurcumin suppresses the progression of atherosclerosis and VSMC-derived foam cell formation by promoting lipophagy. Naunyn Schmiedebergs Arch Pharmacol. 2023;396(12):3659-3670. doi:10.1007/s00210-023-02558-7.
- Zong P et al. TRPM2 deficiency in mice protects against atherosclerosis by inhibiting TRPM2-CD36 inflammatory axis in macrophages. Nat Cardiovasc Res. 2022;1(4):344-360. doi:10.1038/s44161-022-00027-7.
- Sag D, Carling D, Stout RD, Suttles J. Adenosine 5'-monophosphate-activated protein kinase promotes macrophage polarization to an anti-inflammatory functional phenotype. J Immunol. 2008;181(12):8633-8641. doi:10.4049/jimmunol.181.12.8633.
- Chen B, Li J, Zhu H. AMP-activated protein kinase attenuates oxLDL uptake in macrophages through PP2A/NF-κB/LOX-1 pathway. Vascul Pharmacol. 2016;85:1-10. doi:10.1016/j.vph.2015.08.012.
- Chawla A et al. A PPARγ-LXR-ABCA1 pathway in macrophages is involved in cholesterol efflux and atherogenesis. Mol Cell. 2001;7(1):161-171. doi:10.1016/S1097-2765(01)00164-2.
- Saenz J et al. Grapefruit flavonoid naringenin regulates the expression of LXRα in THP-1 macrophages by modulating AMP-activated protein kinase. Mol Pharm. 2018;15(5):1735-1745. doi:10.1021/acs.molpharmaceut.7b00797.
- Larrede S et al. Stimulation of cholesterol efflux by LXR agonists in cholesterol-loaded human macrophages is ABCA1-dependent but ABCG1-independent. Arterioscler Thromb Vasc Biol. 2009;29(11):1930-1936. doi:10.1161/ATVBAHA.109.194548.
- Zhao GJ et al. Antagonism of betulinic acid on LPS-mediated inhibition of ABCA1 and cholesterol efflux through inhibiting nuclear factor-kappaB signaling pathway and miR-33 expression. PLoS One. 2013;8(9):e74782. doi:10.1371/journal.pone.0074782.
- Zhai T et al. Unique immunomodulatory effect of paeoniflorin on type I and II macrophages activities. J Pharmacol Sci. 2016;130(3):143-150. doi:10.1016/j.jphs.2015.12.007.
- Mei J et al. Tetramethylpyrazine and Paeoniflorin Synergistically Attenuate Cholesterol Efflux in Macrophage Cells via Enhancing ABCA1 and ABCG1 Expression. Evid Based Complement Alternat Med. 2022;2022:4304790. doi:10.1155/2022/4304790.
- Cao Y et al. Paeoniflorin suppresses kidney inflammation by regulating macrophage polarization via KLF4-mediated mitophagy. Phytomedicine. 2023;116:154901. doi:10.1016/j.phymed.2023.154901.
- Martinez Molina D et al. Monitoring drug target engagement in cells and tissues using the cellular thermal shift assay. Science. 2013;341(6141):84-87. doi:10.1126/science.1233606.
- Xue J et al. Transcriptome-based network analysis reveals a spectrum model of human macrophage activation. Immunity. 2014;40(2):274-288. doi:10.1016/j.immuni.2014.01.006.