Reniform nematod enfeksiyonu, pamuk verimini ve lif kalitesini önemli ölçüde azaltır. Lignin, bitki hücre duvarlarını güçlendirir ve zararlılara karşı yapısal savunmalara katkıda bulunur, ancak pamukta reniform nematod direncindeki rolü henüz incelenmemiştir. Bu çalışma, floroglusinol boyama kullanarak reniform nematoda dirençli ve duyarlı pamuk (Gossypium arboreum) genotiplerinin köklerindeki lignin birikimini görselleştirmek için histokimyasal bir iş akışını tanımlamaktadır.
Araştırma makalesi
Böbrek Şekilli Nematodlara Dirençli ve Duyarlı Pamuk Genotipleri Arasındaki Lignin Farklılıkları için Histokimyasal Analiz
Bu makalede
Özet
Özet
Böbrek şeklinde nematodlar (Rotylenchulus reniformis), özellikle Amerika Birleşik Devletleri'nin güneyinde pamuk üretimi üzerinde önemli bir kısıtlayıcı faktördür. Böbrek şeklinde nematod, 400'den fazla nematod türü arasında en önemli ikinci zararlıdır. Bu nematodlar küresel gıda güvenliği için bir tehdit oluşturmaktadır. Artan çevresel ve insan sağlığı endişeleri ile nematisidlerin maliyeti, dirençli pamuk germplazmasına olan ilgiyi artırmıştır. Bitki hücre duvarı, özellikle de lignin, biyotik strese karşı dirençte rol oynayan kritik bir biyopolimerdir. Nematodlar kök dokularını enfekte ettiği için, lignin gibi hücre duvarı bileşenleri savunmaya katkıda bulunabilir; ancak pamuk köklerindeki lignin aracılı bariyerler tam olarak karakterize edilmemiştir. Bu çalışma, enfekte edilmemiş koşullar altında, gerçek yaprak aşamasındaki böbrek şeklinde nematoda dirençli (A2-514, A2-995) ve duyarlı pamuk (Gossypium arboreum) genotiplerinde lignin birikimi farklarını görselleştirmek için standartlaştırılmış bir floroglusinol-HCl histokimyasal boyama protokolü kullanmıştır. Bu boya, asit varlığında ligninin koniferil aldehit ve sinapil aldehit gibi hidroksi sinnamilaldehitlerine özgü olarak bağlanır ve lignini görselleştirmek için pembemsi mor bir renk oluşturur. Dirençli ve duyarlı genotipler arasında belirgin lignin boyama paternleri gözlemlenmiş olup, bu durum ligninle ilişkili yapısal savunmaların potansiyel rolünü desteklemektedir.
Giriş
Pamuk, lifleri için dünya çapında yetiştirilmektedir ve özellikle önemli verim kayıplarına neden olabilen nematodlar gibi toprak kökenli zararlılara karşı oldukça hassastır. Bunlar arasında böbrek şeklinde nematod (Rotylenchulus reniformis), küresel ölçekte pamuğu ve diğer ürünleri etkileyen önemli bir patojendir ve istilaların verimi %50'den fazla azaltabildiği Amerika Birleşik Devletleri'nin güney bölgelerinde belirgin etkileri vardır1. Toprakta yaşayan bu mikroskobik organizma, su ve besin alımını bozarak ve beslenme alanları oluşturarak bitki canlılığını, biyokütleyi ve lif verimini düşürerek pamuk köklerini parazitler2 (Şekil 1). Böbrek şeklinde nematod enfeksiyonu, çiçeklenme zamanını geciktirerek, koza boyutunu ve sayısını azaltarak ve lif kalitesini bozarak pamuk bitkisi büyümesini değiştirir3. Mississippi, Alabama ve Louisiana'da ciddi kayıplar bildirilmiştir4. Nematod istilalarını yönetmek için yaygın olarak nematisitler kullanılmaktadır, ancak bunların yüksek maliyeti ile çevre ve insan sağlığı üzerindeki olumsuz etkileri, alternatiflere duyulan ihtiyacı zorunlu kılmıştır5,6. Dirençli germplasm geliştirilmesi, böbrek şeklinde nematod hasarını hafifletmek için gelecek vaat eden bir yaklaşımı temsil eder4. Nematodlar kök dokuları içinde beslendikleri için, özellikle lignifikasyon olmak üzere hücre duvarı bazlı savunmaların; istilayı kısıtladığı, patojen kaynaklı hücre duvarı yıkan enzimlerini inhibe ettiği ve nematod beslenme alanlarının kurulmasını ve genişlemesini sınırladığı hipotezi öne sürülmüştür7,8,9. Artan lignifikasyon, çeşitli bitki türlerinde patojen duyarlılığının azalmasıyla ilişkilendirilmiştir10,11,12,13,14. Pamuk üzerine yapılan önceki araştırmalar, lignin ve lakkaz gen ekspresyonunu Verticillium dahliae'ye karşı dirençle ilişkilendirmiş15 ve Fusarium'a dirençli ve duyarlı kültivarlar üzerine yapılan çalışmalar, dirençli kültivarlarda daha yüksek lignin seviyeleri olduğunu ortaya koymuştur16. Lignin biyosentez genlerinin baskılanmasının duyarlılığı artırdığı Arabidopsis ve pirinçteki benzer gözlemler, lignifikasyonun bitki savunmasındaki önemini vurgulamaktadır.
Lignin, vasküler bitkilerin sekonder hücre duvarlarında bulunan; yapısal sertlik, mekanik dayanıklılık ve hidrofobiklik kazandıran karmaşık bir fenolik biyopolimerdir17. Shikimat ve fenilpropanoid yolakları aracılığıyla sentezlenen lignin, selülozdan sonra yeryüzündeki en bol bulunan ikinci biyopolimerdir ve dünyanın organik karbonunun yaklaşık %30'unu oluşturur18,19. Lignin, selüloz-hemiselüloz ağını güçlendirerek yük taşıyan dokuları sağlamlaştırır ve genel bitki gelişimini destekler. Lignin; özellikle ksilem, sklerenkim, floem lifleri ve periderm gibi oldukça özelleşmiş dokularda belirgindir ve su ile minerallerin verimli taşınması için gerekli olan su itici bir bariyer oluşturur. Yapısal işlevlerinin yanı sıra lignin, patojen girişini kısıtlayan ve biyotik ile abiyotik streslerden kaynaklanan hasarı minimize eden biyokimyasal ve fiziksel bir savunma bariyeri görevi görür20,21,22. Lignifikasyon; nekrotroflar, biyotroflar ve hemibiyotroflar dahil olmak üzere geniş bir patojen spektrumuna karşı dirençte merkezi bir rol oynayan dinamik bir süreçtir. Birincil monolignoller olan sinapil, koniferil ve p-kumaril alkolden biyosentezi; türe, doku tipine ve gelişim aşamasına göre farklılık göstererek direnç derecesini etkiler. Patojen istilası veya abiyotik stres, genellikle lokalize lignin birikimini tetikleyerek bitki savunmalarını daha da güçlendirir23,24.
Reniform nematod direncinde ligninin rolünün açıklığa kavuşturulması, pamuk yönetim stratejilerini geliştirmek açısından kritik öneme sahiptir. Lignin dağılımının görsel ve biyokimyasal karakterizasyonu, erken savunma tepkilerinin temelini oluşturan hücre duvarı modifikasyonlarının mekansal ve zamansal dinamikleri hakkında bilgi sunar. Bu çalışma, reniform nematoda dirençli ve duyarlı pamuk genotiplerinde doğal olarak bulunan lignin birikim modellerini analiz etmek için histokimyasal floroglusinol boyamasını kullanmakta; böylece hücre duvarıyla ilişkili direnç özelliklerini değerlendirmek ve ürün dayanıklılığını artırmayı amaçlayan ıslah programlarına veri sağlamak için pratik bir ön çerçeve sunmaktadır.
Protokol
Deneyler, aşağıda açıklanan bitki materyalleri kullanılarak bir serada yürütülmüştür. Bu çalışmada kullanılan tüm kimyasallar, ekipmanlar ve reaktifler Materyaller Tablosunda detaylandırılmıştır.
Bitki materyali
Hem duyarlı (A2‑20, PI 129742; A2‑40, PI 183202) hem de dirençli germplasm (A2‑514, PI 616008; A2‑995, PI 629323) için tohumlar temin edildi. Ayrıca, duyarlı bir kültivar olan Deltapine 16 bu çalışmaya dahil edildi. Tohumlar steril suya yerleştirildi ve oda sıcaklığında 24 h boyunca bekletildi. Islatma işleminin ardından tohumlar, kalıntı kontaminantları uzaklaştırmak için taze steril su ile iyice durulandı. Durulanan tohumlar daha sonra, önceden ıslatılmış ve otoklavlanmış kağıt havlularla kaplanmış steril Petri plaklarına aktarıldı ve çimlenmeyi kolaylaştırmak için oda sıcaklığında 2 gün boyunca inkübe edildi (Şekil 2).
Sera dikimi
Plastik saksılar, önceden nemlendirilmiş nem kontrolü sağlayan saksı toprağı ile dolduruldu. Toprak, şaşırtma işleminden iki gün önce önceden ıslatıldı. Çimlenmiş fideler daha sonra dikkatlice önceden ıslatılmış toprağa şaşırtıldı ve gerçek yaprak aşamasına gelene kadar kontrollü sera koşullarında 28 °C/25 °C gündüz/gece döngülerinde tutuldu (Şekil 2). Her genotip için üç biyolojik tekrar dikildi.
Numune toplama
Gerçek yaprak aşamasındaki bitkiler, kök hasarını en aza indirmek için çevreleyen toprak ortamı gevşetilerek topraktan nazikçe çıkarıldı. Yapışmış toprak parçacıklarını uzaklaştırmak için kökler suyla 2–3 kez durulandı. Her genotipten kesit almak üzere kök ve sürgün dokuları toplandı (Şekil 3).
Floroglusinol boyama solüsyonunun hazırlanması
%3'lük floroglusinol çözeltisi, 0,45 g floroglusinolün iki ölçek %100 etanol (10 mL) ve bir ölçek derişik HCl (5 mL) karışımında, çeker ocak altında çözülmesiyle hazırlandı. Boyama çözeltisi, daha önce tanımlanmış bir yönteme göre hazırlandı16.
Ligninin histokimyasal analizi için kesit hazırlama ve boyama prosedürü
İnce transvers kesitler elde etmek için steril bir jilet kullanılarak kök ve sürgün dokuları kesildi (Şekil 3). Taze kesitler mikroskop lamlarına aktarıldı ve 1 dk boyunca 20 µL %3'lük floroglusinol boyama çözeltisi ile kaplandı. Kesitler daha sonra steril su ile durulandı, lameller altında sabitlendi ve görüntüleri alındı (Şekil 4, Şekil 5, Şekil 6). Gövde dokuları için de aynı prosedür uygulandı (Ek Şekil 1).
Mikroskobik görüntüleme
Görüntüleme, dijital bir mikroskop kullanılarak gerçekleştirilmiştir. Boyanmış doku örneklerini içeren hazırlanmış cam lamlar, görüntüleme için mikroskop platformuna yerleştirilmiştir. Mikroskop görüntüleme yazılımının başlatılmasının ardından, parlak alan modunda 100x, 200x ve 300x istenen büyütmeler seçilmiştir. Doku kesitlerindeki lignin boyama paternlerini net bir şekilde görselleştirmek için kaba ve ince odak ayarları yapılmıştır. Görüntüler kaydedilmiş ve ilgili örnek tanımlama numaralarıyla saklanmıştır. Ardından, lignin boyamasındaki farkları değerlendirmek amacıyla hem dayanıklı hem de duyarlı genotiplerden alınan görüntüler incelenerek karşılaştırmalı analiz yapılmıştır. Dayanıklı ve duyarlı genotiplerin görüntüleri, tek tip eşik değerleri kullanılarak boyanan alan yüzdesindeki farklılıkları belirlemek amacıyla ImageJ ile karşılaştırılmıştır. Üç tekerrürün tamamı işlendikten sonra sonuçlar CSV dosyaları olarak dışa aktarılmıştır. Daha sonra, dayanıklı ve duyarlı genotipleri karşılaştırmak için grafikler hazırlanmıştır.
Sonuçlar
Dirençli ve duyarlı pamuk genotiplerinin histokimyasal analizi
Gerçek yaprak aşamasındaki kök ve gövde enine kesitlerinin histokimyasal incelemesi, Şekil 4, Şekil 5 ve Ek Şekil 1'de (gövde enine kesitleri) gösterildiği üzere, dirençli ve duyarlı genotipler arasında görsel farklılıklar olduğunu ortaya koymuştur. Daha yüksek büyütmeler (100x–300x), bu farklılıkların ayrıntılı görüntülerini sağlamıştır (dirençli genotipler için Şekil 4A–C ve Şekil 5A–C; duyarlı genotipler için Şekil 4D–F ve Şekil 5D–F). Lignin boyama modelleri doku tiplerine göre farklılık göstermiştir: dirençli genotipler gövdelerde daha düşük veya benzer lignin boyama modelleri sergilerken, duyarlı genotipler görsel olarak nispeten daha yüksek gövde lignifikasyonu göstermiştir (Ek Şekil 1A–D).
Lignin boyamasının kantitatif görüntü analizi
Bu çalışmaya dahil edilen hassas bir kültivar olan Deltapine 16, %12, 17,8 ve 16,3'lik boyalı alan yüzdesi değerleri ile daha düşük lignin boyanması sergilemiştir (Şekil 6A–C, Şekil 6D). Hassas genotip A2-40'ın boyalı alan yüzdesi değerleri %25,2, 19,9 ve 28,75 iken, dirençli genotip A2-995 %54,95, 58,71 ve 69,85'lik boyalı alan yüzdesi değerleri göstermiştir (Şekil 7). Öte yandan A2-20'nin boyalı alan yüzdesi değerleri %16,6, 21,3 ve 20,4 iken A2-514 %49,8, 34,1 ve 43,38'lik boyalı alan yüzdesi değerleri göstermiştir (Şekil 8). Karşılaştırma sonucunda p-değeri 0,06 olarak bulunmuştur. Bu değerler farklı eşik değerleri kullanılarak elde edildiği için, tekrarlar arasında tekrarlanabilirliği sağlamak amacıyla özdeş ton, doygunluk ve parlaklık eşikleri kullanılarak tek tip eşikli ImageJ analizi gerçekleştirilmiştir. Dirençli genotip (A2-514), hassas genotipe (A2-20) kıyasla nispeten daha fazla boyanma göstermiştir. Boyalı alan yüzdesi, kesitteki toplam doku piksellerine oranla lignin-pozitif piksellerin oranı olarak hesaplanmıştır. Hassas genotip A2-20 ve dirençli genotip A2-514'ün tek tip eşikli kantitatif karşılaştırması Şekil 9'da gösterilmiştir. Genel olarak, tek tip eşik analizi, bu genotipler arasında genotipe özgü lignifikasyon farklarının mevcut olduğunu kanıtlamaktadır.
VERİ ERİŞİLEBİLİRLİĞİ:
Ham veriler Ek Dosya olarak eklenmiştir.
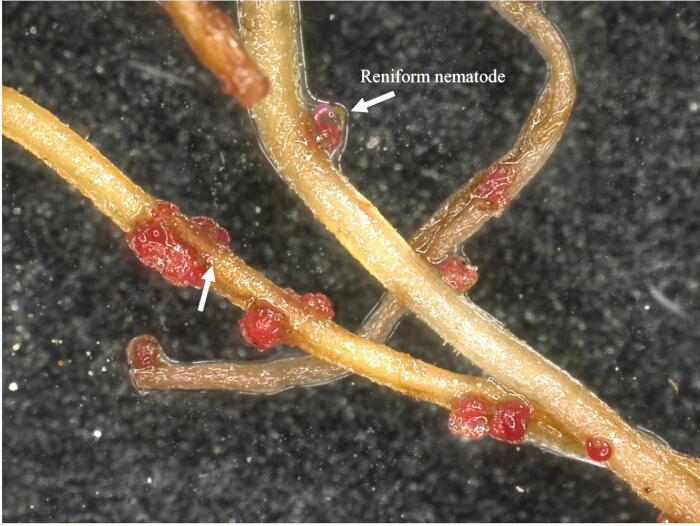
Şekil 1: Pamuk kökleriyle beslenen reniform nematodların mikroskobik görüntüsü. Kırmızı gıda boyası ile boyama sonrası, pamuk kökleriyle beslenen reniform nematodlar 50x büyütmede gösterilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
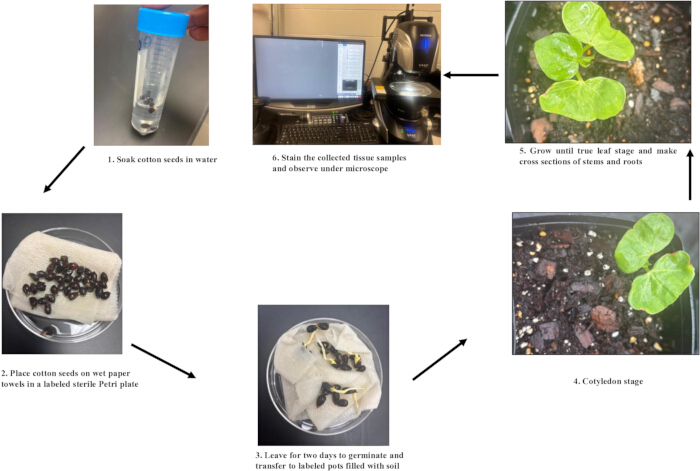
Şekil 2: Lignin histokimyasal analizi için bitki materyalinin hazırlanması. İş akışı şu adımlardan oluşur: (1) pamuk tohumlarını suda bekletin; (2) tohumları etiketli steril bir Petri kabındaki ıslak kağıt havluların üzerine yerleştirin; (3) tohumların 2 gün boyunca çimlenmesini sağlayın ve fideleri toprak içeren etiketli saksılara aktarın; (4) fideleri kotiledon aşamasına kadar büyütün; (5) bitkileri gerçek yaprak aşamasına kadar büyütmeye devam edin ve gövde ile köklerin enine kesitlerini hazırlayın; ve (6) toplanan doku kesitlerini boyayın ve mikroskop altında inceleyin. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
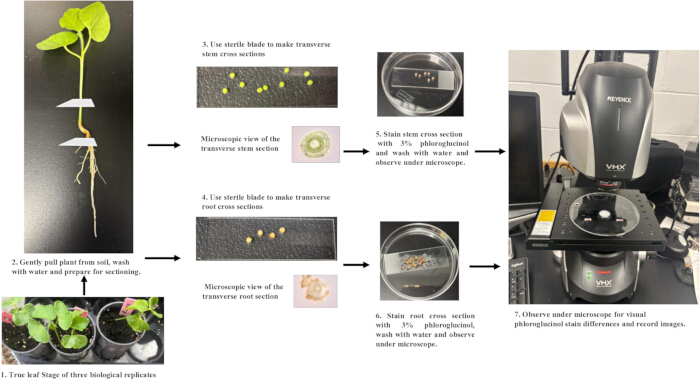
Şekil 3: Floroglusinol-HCl kullanılarak pamuk kök ve gövde kesitlerinin toplanması ve boyanması. İş akışı şu adımlardan oluşmaktadır: (1) üç biyolojik tekrarı gerçek yaprak evresine kadar büyütün; (2) bitkileri topraktan nazikçe çıkarın, suyla yıkayın ve kesit alma işlemine hazırlayın; (3) enine gövde kesitleri hazırlamak için steril bir bıçak kullanın; (4) enine kök kesitleri hazırlamak için steril bir bıçak kullanın; (5) gövde kesitlerini %3 floroglusinol-HCl ile boyayın, suyla durulayın ve mikroskop altında inceleyin; (6) kök kesitlerini %3 floroglusinol-HCl ile boyayın, suyla durulayın ve mikroskop altında inceleyin; ve (7) floroglusinol boyama farklarını görselleştirmek için boyanmış kesitleri mikroskop altında inceleyin ve görüntüleri kaydedin. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
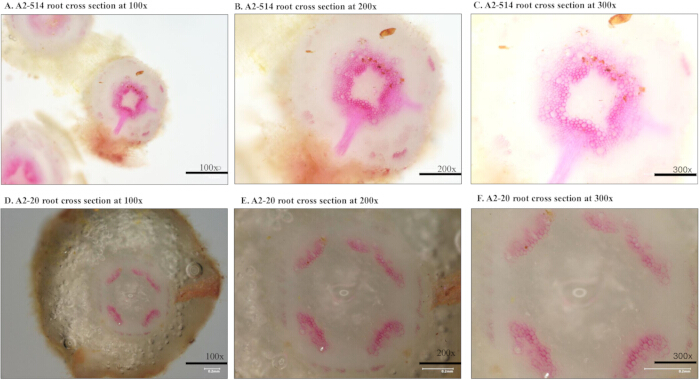
Şekil 4: A2-514 ve A2-20 pamuk genotiplerinin enine kök kesitlerinde lignin boyaması. Dirençli A2-514 genotipinin lignin boyalı enine kök kesitleri sırasıyla (A) 100x, (B) 200x ve (C) 300x büyütmede. Hassas A2–20 genotipinin lignin boyalı enine kök kesitleri sırasıyla (D) 100x, (E) 200x ve (F) 300x büyütmede. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
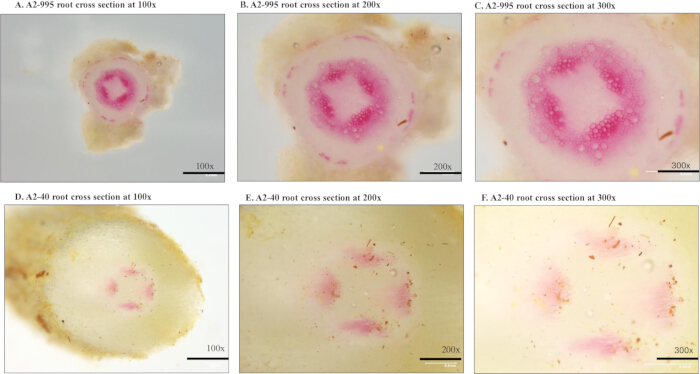
Şekil 5: A2-995 ve A2-40 pamuk genotiplerinin enine kök kesitlerinde lignin boyaması. Dirençli genotip A2-995'in lignin ile boyanmış enine kök kesitleri (A) 100x, (B) 200x ve (C) 300x büyütmede. Hassas genotip A2-40'ın lignin ile boyanmış enine kök kesitleri (D) 100x, (E) 200x ve (F) 300x büyütmede. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
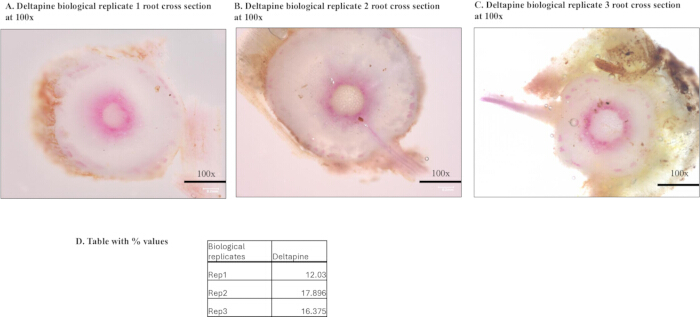
Şekil 6: Deltapine 16'nın enine kök kesitlerinin lignin boyaması ve kantitatif analizi. Duyarlı kültivar Deltapine 16'nın üç biyolojik tekrarının 100x büyütmedeki lignin boyalı enine kök kesitleri: (A) biyolojik tekrar 1, (B) biyolojik tekrar 2 ve (C) biyolojik tekrar 3. (D) Kantitatif ImageJ analizi ile belirlenen üç biyolojik tekrar için boyanan alan yüzdesi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
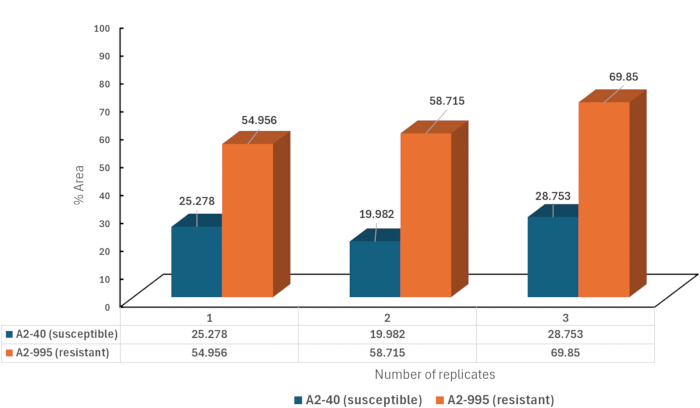
Şekil 7: A2-40 ve A2-995 pamuk genotiplerinde lignin boyamasının kantitatif analizi. Hassas genotip A2-40 ve dirençli genotip A2-995'in üç biyolojik replikası için ImageJ analizi ile belirlenen boyanmış alan yüzdesi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
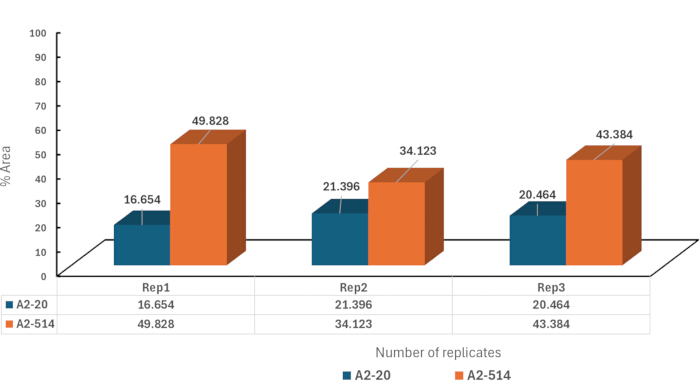
Şekil 8: A2-20 ve A2-514 pamuk genotiplerinde lignin boyamasının kantitatif analizi. Hassas genotip A2-20 ve dirençli genotip A2-514'ün üç biyolojik tekrarı için ImageJ analizi ile belirlenen boyanmış alan yüzdesi. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
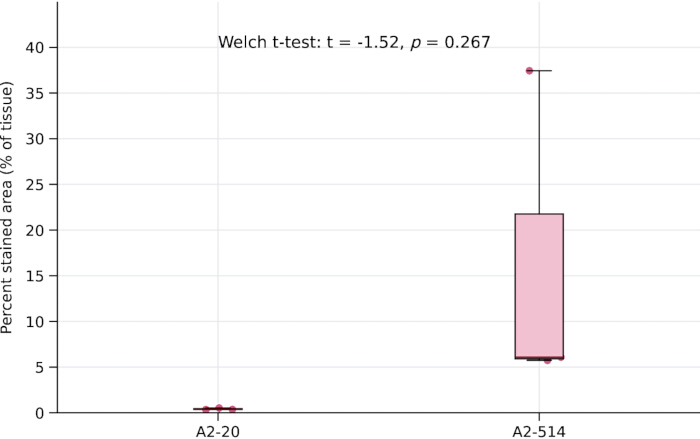
Şekil 9: A2-20 ve A2-514 pamuk genotiplerinde lignin boyamasının tekdüze eşikli kantifikasyonu. Tekdüze eşikli görüntü analizi sonrası duyarlı genotip A2-20 ve dirençli genotip A2-514'teki boyanmış alan yüzdesi. İstatistiksel karşılaştırma Welch t-testi ile yapılmıştır (t = −1.52, p = 0.267). Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
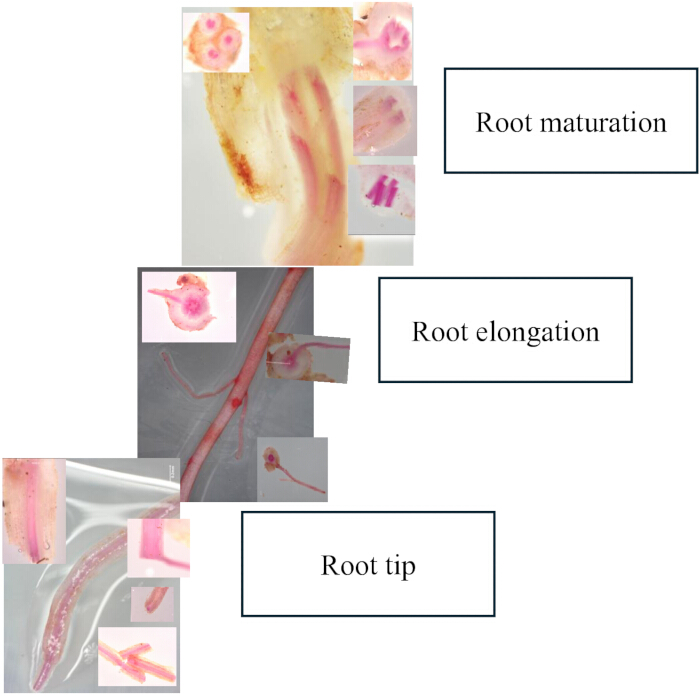
Şekil 10: Farklı kök bölgelerinde lignin boyamasının görselleştirilmesi. Kök olgunlaşma, kök uzama ve kök ucu bölgelerindeki lignin boyamasını gösteren temsilci görüntüler. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil 1: Dirençli ve duyarlı pamuk genotiplerinin gövde enine kesitlerinde lignin boyaması. (A) duyarlı A2-20, (B) dirençli A2-514, (C) duyarlı A2-40 ve (D) dirençli A2-995'in 100x büyütmedeki lignin boyalı gövde enine kesitleri. Lütfen bu dosyayı indirmek için buraya tıklayın.
Tartışma
Bitki hücre duvarlarıyla ilişkili lignin, nematodlar dahil olmak üzere zararlılara karşı önemli bir fiziksel bariyer görevi görür. Mevcut çalışmada, dirençli ve hassas pamuk genotipleri, daha önce Fusarium'a dirençli ve hassas kültivarlarda bildirilen kalıba benzer şekilde, lignin boyamasında belirgin görsel farklılıklar göstermiştir. Boyama işlemi; olgunlaşma, uzama ve kök ucu gibi kök bölgeleri boyunca lignin dağılımının net bir şekilde görselleştirilmesini sağlamış ve ligninin yoğunluğunun üst kökten uca doğru kademeli olarak arttığı görülmüştür (Şekil 10). Bu kalıplar faydalı anatomik bilgiler sunsa da, nematod enfeksiyonuna yanıt olarak ligninin dinamikleri mevcut çalışmada değerlendirilmemiş olup gelecekteki araştırmalarda doğrulanması gerekmektedir. Önceki çalışmalar, patojen varlığının lignin biyosentezini tetikleyebileceğini öne sürmekte ve bu durum, nematod baskısı altındaki lignin değişimlerinin incelenmesi gerekliliğini pekiştirmektedir. Lignin miktarı ve bileşimine yönelik biyokimyasal analizlerin eklenmesi, bu genotiplerde gözlemlenen boyama kalıplarının yorumlanmasını daha da güçlendirecektir. Genel olarak bu bulgular, pamuk böbrek nematodu direncinde lignin aracılı yapısal savunmaların rolünü vurgulamakta ve bu özelliklerin karakterizasyonunda floroglusinol boyamasının kullanışlılığını kanıtlamaktadır. Anatomik, biyokimyasal ve moleküler yaklaşımların entegrasyonuna devam edilmesi, lignin biyosentezinin ve bunun böbrek nematodlarına karşı kalıcı direnç geliştirmeye katkısının daha derinlemesine anlaşılmasını sağlayacaktır.
Açıklamalar
Yazarların beyan edecek herhangi bir çıkar çatışması yoktur.
SORUMLULUK REDDİ
USDA, fırsat eşitliği sunan bir sağlayıcı, işveren ve borç verendir. Bu yayında ticari isimlerin veya ticari ürünlerin belirtilmesi, yalnızca spesifik bilgi sağlama amaçlıdır ve ABD Tarım Bakanlığı tarafından tavsiye edildiği veya onaylandığı anlamına gelmez. Bu makaledeki bulgular ve sonuçlar yazar(lar)a aittir ve herhangi bir resmi USDA veya ABD Hükümeti kararı veya politikası olarak yorumlanmamalıdır.
Teşekkürler
Yazarlar, bu çalışmada kullanılan mikroskopi laboratuvarı olanaklarına erişim sağladığı için Dr. Katherine Parys'e teşekkür eder. Yazarlar ayrıca, taslağın iyileştirilmesindeki önerileri ve yardımları için Dr. Junping Chen ve Dr. Abdulraheem'e teşekkür eder. Bu araştırma, USDA-ARS 6066-21000-053-00D projesi tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Nem kontrollü saksı toprağı | Miracle-Gro | 073561005197 032247557832 | Amazon web sitesi |
| Mikroskop | Keyence VHX | VHX3000 | Herhangi bir benzer parlak alan mikroskobu kullanılabilir |
| Steril jilet bıçakları | Workpro | W018057 | Amazon web sitesi |
| Kesme tahtası | Freshware | 15.75"L x 9.8"W x 0.3"Th | Amazon web sitesi |
| Lam ve lamel | Amscope | BS-50P-100S-22X4 | Herhangi bir marka kullanılabilir. Bu ürün amazon'da mevcuttur. |
| Steril su/ Distile su/ otoklavlanmış su | Gibco | 15230147 | Herhangi bir marka/ steril otoklavlanmış su kullanılabilir |
| Floroglusinol boyası | Fischer Scientific | AC241761000 | Fischer Scientific'te mevcuttur |
| Konsantre HCl | Fischer Scientific | CAS: 7647-01-0 | Fischer Scientific'te mevcuttur |
| Mutlak etanol | Fischer Scientific | 64-17-5 | Fischer Scientific'te mevcuttur |
| Saksılar | BTPLASTIK | B0DSBQMXHN | Herhangi bir plastik saksı kullanılabilir, amazon'da mevcuttur |
| Petri kapları | Kingdder | B0BS95MCGS | Amazon'da mevcuttur ve herhangi bir başka marka kullanılabilir |
| Kağıt havlular | Tork | MB540A | Amazon'da mevcuttur ve herhangi bir başka marka kullanılabilir |
| Image J | Yazılım | Çevrimiçi mevcuttur | Kullanıma hazır ücretsiz yazılım |
Kaynaklar
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.