Bu çalışma, Qiming Granül'ün (QMG) bağırsak-retina eksenini modüle ederek diyabetik retinopatiyi (DR) iyileştirdiğini göstermektedir. QMG, bağırsak mikrobiyotasını yeniden şekillendirmiş, sistemik inflamasyonu baskılamış ve CMKLR1 merkezli düzenleyici ağı geri kazandırarak retinal histopatolojik hasarı tersine çevirmiştir. Bu bulgular, QMG'yi DR için gelecek vaat eden bir bağırsak-retina terapötik stratejisi olarak konumlandırmaktadır.
Araştırma makalesi
Diyabetik Retinopatide Qiming Granül'ün Gut-Retina Ekseni Aracılığıyla CMKLR1 Merkezli Ağ ve Sistemik İnflamasyon ile Korelasyonel Analizi
Bu makalede
Özet
Özet
Diyabetik retinopati (DR), kronik hiperglisemi ve sistemik inflamasyon tarafından tetiklenen bir nörovasküler komplikasyondur ve ortaya çıkan kanıtlar, bağırsak-retina ekseninin kritik ancak yeterince değerlendirilmemiş bir terapötik hedef olduğunu vurgulamaktadır. Bu çalışma, Qiming Granülün (QMG) bağırsak-retina eksenini modüle ederek DR'ye karşı koruyucu etkinlik gösterip göstermediğini araştırmaktadır. C57BL/6 fareleri randomize edilerek deneysel gruplara ayrılmış ve farklı müdahalelere tabi tutulmuştur. Retinal histopatolojik değişiklikler, Hematoksilin-Eozin (HE) boyaması ile değerlendirilmiştir. İnflamatuar sitokinlerin (IL-1β, IL-6, TNF-α) serum düzeyleri, enzim bağlı immünosorbent assay (ELISA) ile ölçülmüştür. Hem retinal hem de kolonik dokulardaki temel düzenleyici proteinlerin (CMKLR1, Wnt5a, PPAR-γ, AP-1, TP53) ekspresyonu Western blot (WB) ile tespit edilmiştir. Bağırsak mikrobiyota kompozisyonu ve çeşitliliği, tam uzunlukta 16S rDNA sekileme ile karakterize edilmiştir. Bağırsak mikrobiyotası ile inflamatuar faktörler veya temel proteinler arasındaki ilişkileri değerlendirmek için korelasyon analizleri yapılmıştır. QMG tedavisi, retinal laminer arşivin restorasyonu, retinal ganglion hücresi sayılarının kısmi geri kazanımı (P < 0.001) ve retinal incelmenin tersine dönmesiyle (P < 0.01) kanıtlandığı üzere, retinal histopatolojik anomalileri iyileştirmiştir. Ayrıca serum IL-1β, IL-6 ve TNF-α düzeylerini belirgin şekilde düşürmüştür (P < 0.0001). Bağırsak-retina ekseni boyunca QMG, temel düzenleyici proteinlerin, özellikle CMKLR1 merkezli ağın (Wnt5a, PPAR-γ, AP-1, TP53) anormal ekspresyonunu tersine çevirmiştir. Dahası, QMG bağırsak mikrobiyota kompozisyonunu, çeşitliliğini ve fonksiyonunu restore etmiştir ve korelasyon analizleri QMG'nin bağırsak-retina eksenini modüle etmek için sistemik inflamasyonu bu düzenleyici proteinlerle ilişkilendirdiğini ortaya koymuştur. Bu çalışma, QMG'nin CMKLR1 merkezli düzenleyici ağı (Wnt5a, PPAR-γ, AP-1 ve TP53 dahil) ve sistemik inflamasyonu bağırsak-retina ekseni aracılığıyla ilişkilendirerek DR'yi iyileştirdiğine dair ön farmakolojik kanıtlar sunmakta ve QMG'yi DR için gelecek vaat eden bir bağırsak-retina terapötik stratejisi olarak konumlandırmaktadır.
Giriş
Diabetes mellitus'in (DM) en yaygın mikrovasküler komplikasyonlarından biri olan diyabetik retinopati (DR), dünya genelinde çalışma çağındaki yetişkinler arasında körlüğün önde gelen nedenlerinden biridir1. Küresel ölçekte DR, DM popülasyonunun yaklaşık %20–30'unu etkilemektedir2. Kronik hiperglisemi; bozulmuş nörovasküler kenetlenme, artmış enflamatuar yanıtlar ve oksidatif stres dahil olmak üzere bir dizi patolojik olayı tetikleyerek DR patogenezini yönlendirir3. Son zamanlarda, retinopatisi olan diyabetik hastalarda, retinopatisi olmayanlara kıyasla bağırsak mikrobiyota çeşitliliği ve kompozisyonunda değişiklikler gözlemlenmiştir4,5. Sonuç olarak, bağırsak homeostazını retinal sağlıkla ilişkilendiren çift yönlü bir iletişim ağı olan bağırsak-retina ekseni, DR progresyonuna katkıda bulunan yeni bir unsur olarak ortaya çıkmıştır. Ancak, bağırsak-retina sinyallerini retinal patolojiye dönüştüren spesifik moleküler mediyatörler büyük ölçüde belirsizliğini korumakta, bu da güvenilir biyobelirteçlerin ve terapötik hedeflerin belirlenmesini sınırlamaktadır.
Bağırsak-retina ekseni, intestinal mikrobiyota ve metabolitleri ile retinal dokular arasında immünolojik, metabolik, nöroendokrin ve vasküler yollar aracılığıyla gerçekleşen karmaşık ve çift yönlü bir iletişim ağını tanımlayarak homeostatik dengelerini modüle eder6. Moleküler düzeyde bağırsak-retina ekseni, özellikle AP-1 ve TP53 olmak üzere, temel stres yanıtı veren ve hücre kaderini belirleyen proteinlerin düzensizliği ile karakterize edilir7,8,9. Ayrıca, temel bir kemokin reseptörü olan CMKLR1, endotelyal disfonksiyon ve metabolik düzensizliğin temel bir aracısı olarak ortaya çıkmakta; böylece bağırsak mikrobiyota değişiklikleri ile diyabetik retinopati patogenezi arasında kritik bir bağlantı kurmaktadır10. Önemli ölçüde, Wnt sinyal yolu retinal vasküler homeostazın ve intestinal epitel bariyer fonksiyonunun korunmasında çift yönlü düzenleyici roller üstlenirken11, PPAR sinyal yolu hem oküler hem de intestinal dokularda inflamatuar yanıtların ve metabolik süreçlerin ana düzenleyicisi olarak görev yapar12,13. Bu moleküler oyuncular, bağırsak-retina ekseni içinde birbirine bağlı bir sinyal ağını oluşturarak diyabetle ilişkili komplikasyonlar için yeni mekanistik içgörüler ve terapötik fırsatlar sunmaktadır. Bu nedenle, bu eksen boyunca meydana gelen yapısal ve fonksiyonel değişikliklerin hedeflenmesi, DR yönetimi için gelecek vaadeden bir stratejiyi temsil etmektedir.
Geleneksel Çin Tıbbı (TCM), tarihsel olarak diyabet ve ilgili retinopati tedavisinde önemli bir rol oynamış ve terapötik kararlar sendrom farklılaştırmasına dayandırılmıştır14. Astragalus membranaceus, Pueraria lobata, Rehmannia glutinosa, Lycium barbarum, Senna obtusifolia, Leonurus japonicus, Typha angustifolia ve Whitmania pigra bileşenlerinden oluşan Qiming Granül (QMG), DR tedavisinde yaygın olarak uygulanmaktadır. Çin Ulusal Tıbbi Ürünler Yönetimi tarafından onaylanan (Onay No. Z20090036) QMG, klinik deneyleri başarıyla tamamlamış ve pazarlama izni almıştır. QMG, retinal kapillerlerdeki bazal membranın kalınlaşmasını önleyerek, perisitlerin ve retinal mikrovaskülaturanın gördüğü zararı azaltarak ve gözün yerel patolojik morfolojisini koruyarak15 koruyucu etkiler sergilemekte, bu da onu DR'yi ele almak için gelecek vadeden bir tedavi haline getirmektedir. Temel proteinleri ve inflamatuar faktörleri hedefleyerek, QMG'nin aktif bileşenleri anti-inflamatuar, antioksidan ve anti-apoptotik etkiler göstererek bağırsak-retina ekseninin modülasyonu için mekanistik bir temel oluşturur16. Bu özellikler, QMG'nin bağırsak-retina eksenini potansiyel modülasyonu için mekanistik bir temel sağlamaktadır, ancak bu bağlantıyı araştıran çok az çalışma bulunmaktadır. Bu nedenle, bu çalışma QMG'nin bağırsak-retina eksenini modüle etmedeki etkinliğini doğrulamayı ve DR'deki terapötik potansiyeli için deneysel kanıt sağlamayı amaçlamaktadır.
Bu çalışma, QMG'nin bağırsak-retina eksenini modüle etmedeki etkinliğini doğrulamak için teorik öngörüleri in vivo deneysel verilerle birleştirmektedir. Bu bulgular, QMG'nin, CMKLR1 merkezli düzenleyici ağı (Wnt5a, PPAR-γ, AP-1 ve TP53 dahil) bağırsak-retina ekseni aracılığıyla sistemik inflamasyonla eşleştirerek DR'yi iyileştirdiğini göstermekte ve QMG'yi DR için gelecek vaat eden, bağırsak-retina hedefli bir terapötik strateji olarak konumlandırmaktadır. Grafik özeti Şekil 1'de sunulmuştur.
Protokol
Tüm hayvan deneyleri, ARRIVE kılavuzlarına uygun olarak gerçekleştirilmiştir. Çalışma, Sichuan Scientist Biotechnology Co., Ltd. Etik İnceleme Kurulu tarafından onaylanmıştır (IACUC ISSUE SYST-2024-011). Çalışma tasarımını özetleyen ayrıntılı bir deneysel zaman çizelgesi Ek Şekil 1'de sunulmuştur.
Hayvan hazırlama ve tedavi
Fareler %2 isofluran inhalasyonu ile derin anestezi altına alındı. Derin anestezi altında, retro-orbital enükleasyon yoluyla kan toplandı. Kan toplama işleminin hemen ardından, retinal doku hasadı için göz küreleri enükle edildi. Ardından, ötanaziyi sağlamak amacıyla derin anestezi altında servikal dislokasyon gerçekleştirildi. Daha sonra kolon dokuları hemen diseke edildi. Yan etkiler gösteren hayvanlar derhal çalışmadan çıkarıldı ve uygun veteriner bakımı aldılar.
Rastgeleştirme ve körleme
5 haftalık ve 20 ile 30 gram arasında ağırlığa sahip erkek C57BL/6 fareler, sıcaklık ve nem dahil olmak üzere sıkı şekilde düzenlenen koşullar altında barındırılmıştır. Bir haftalık aklimatizasyonun ardından, C57BL/6 fareleri bilgisayar tarafından oluşturulan rastgele bir sayı dizisi kullanılarak üç gruba (kontrol, model ve müdahale grupları) rastgele atanmıştır. Randomizasyon dizisi, hayvanların bakımı veya sonuç değerlendirmesiyle ilgisi olmayan bir araştırmacı tarafından oluşturulmuştur.
Körlemeyi sağlamak için tüm hayvan bakımı, ilaç uygulaması ve veri toplama işlemleri, grup tahsisatından habersiz araştırmacılar tarafından gerçekleştirilmiştir. Kodlanmış grup atamaları, yalnızca tüm deneyler ve istatistiksel analizler tamamlandıktan sonra açıklanmıştır. Körleme şu kişilere uygulanmıştır: oral gavajı gerçekleştiren teknisyen; retinal histolojiyi değerlendiren patolog ve Western blot (WB) bantlarını niceliksel olarak belirleyen analist.
Örneklem büyüklüğü hesaplaması
Örneklem büyüklüğü, aynı deneysel koşullar altında retinal ganglion hücresi (RGC) sayımlarını değerlendiren öncül bir deneye dayanarak belirlenmiştir. İki yönlü anlamlılık düzeyinin (α) 0,05 ve istatistiksel gücün (1-β) 0,80 olduğu varsayıldığında, model ve müdahale grupları arasındaki RGC sayılarında klinik olarak anlamlı bir farkı tespit etmek için grup başına minimum 5 fare gerekmektedir. Yaklaşık %20'lik potansiyel bir kayıp oranı göz önünde bulundurularak, her grubun 6 fare içereceği şekilde ayarlanmıştır.
Diyabetik hayvanların oluşturulması
Boş kontrol grubuna standart diyet uygulanırken, müdahale ve model gruplarına dört hafta boyunca yüksek yağlı, yüksek şekerli diyet (HFHSD) verilmiştir. Bu diyet dönemini takiben, müdahale ve model gruplarına 35 mg/kg17,18,19,20 dozunda %1 Streptozotosin (STZ) çözeltisi ile intraperitoneal enjeksiyon yapılmıştır. Enjeksiyondan yetmiş iki saat sonra, açlık karşıtı kan glukoz seviyeleri 16,7 mmol/L'nin üzerinde olan farelerin DM modeli başarıyla oluşturulmuş kabul edilmiş ve ileri deneyler için seçilmişlerdir. DM hayvanları yüksek yağlı, yüksek şekerli diyete dört ay daha devam ederken, boş kontrol grubu standart diyetlerini sürdürmüştür.
Taksonomik doğrulama ve kalite değerlendirmesi
QMG'deki sekiz bileşen, Modernize Edilmiş Bitki Adları Arama (MPNS, http://mpns.kew.org/mpns-portal/) kullanılarak taksonomik olarak doğrulanmıştır. QMG'nin bileşim raporlamasının kalitesi, ConPhYMP aracı kullanılarak değerlendirilmiştir.
Uygulama yöntemleri
Müdahale grubundaki hayvanlara oral yolla QMG uygulandı. QMG, Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd.'den satın alındı (Çin Ulusal İlaç Onay No. Z20090036). QMG süspansiyonu, QMG'nin distile su ile homojen şekilde karıştırılmasıyla hazırlandı. Müdahale grubundaki farelere, model ve boş gruplarla eşdeğer hacimdeki süspansiyon oral gavaj yoluyla verildi. Doz, FDA ve Reagan-Shaw21 tarafından önerilen vücut yüzey alanı (BSA) normalizasyon yöntemi kullanılarak, 60 kg yetişkin başına 4,5 g'lık klinik tek terapötik doza (pazarlanan formülasyonun standart birim dozu) göre hesaplandı. Yetişkin insanlar (Km = 37) ve fareler (Km = 3) arasındaki dönüşüm faktörü 12,33 olarak belirlendi ve bu da 0,9 g/kg vücut ağırlığı şeklinde bir fare dozuna karşılık geldi. Model grubu ve boş gruba, oral gavaj yoluyla eşdeğer hacimde salin verildi. Uygulamalar, 3 ay boyunca birbirini takip eden günler sabah 09:00 ile 11:00 saatleri arasında gerçekleştirildi.
Gözlem ve test göstergeleri
Genel yaşam bulguları izlemi
Terapötik müdahaleleri kapsamlı bir şekilde değerlendirmek ve potansiyel komplikasyonları tespit etmek amacıyla vücut ağırlığı, kan glukoz seviyeleri, su ve gıda tüketimi, idrar çıkışı, aktivite seviyeleri ve davranış, vücut sıcaklığının yanı sıra kürk ve cilt durumu dahil olmak üzere genel yaşamsal bulgular ve fizyolojik göstergeler sistematik olarak gözlemlenmiş ve kaydedilmiştir.
HE boyama analizi ile retinadaki morfolojik değişikliklerin gözlemlenmesi
Tüm örnekler, fiksasyonun ardından bir dizi etanol ve ksilen solüsyonu kullanılarak otomatik bir dehydrator ile işlemden geçirilmiş ve ardından parafine gömülmüştür. Sonrasında, 4 µm kalınlığında parafin kesitler alınmış, HE ile boyanmış ve nötral gum ile lam üzerine monte edilmiştir. Retinal görüntüler, 3DHISTECH Pannoramic SCAN tarayıcı kullanılarak taranmıştır. Görüntü analizi ve veri ölçümleri Image-Pro Plus ile gerçekleştirilmiştir.
ELISA analizi ile serum IL-6, TNF-α ve IL-1β tespiti
Kan örnekleri retro-orbital enükleasyon yoluyla toplanmıştır. Serum, 4 °C'de 15 dakika boyunca 1.000 × g santrifüjasyon ile ayrılmış ve analiz aşamasına kadar -80 °C'de saklanmıştır. IL‑1β, IL‑6 ve TNF‑α serum seviyeleri; reaktiflerin dengelenmesi, örneğin eklenmesi, inkübasyon, yıkama, konjugat ve substrat eklenmesi, reaksiyonun sonlandırılması, optik yoğunluk ölçümü ve standart bir eğriye dayalı konsantrasyon hesaplaması dahil olmak üzere standart prosedürlere göre ölçülmüştür. Optik yoğunluk, bir mikroplaka okuyucu kullanılarak 450 nm'de okunmuş ve sitokin konsantrasyonları standart eğrilere göre hesaplanmıştır.
WB analizi ile retina ve kolonla ilişkili kilit düzenleyici proteinlerin tespiti
Tek bir membran üzerinde üç bağımsız biyolojik tekrar gerçekleştirildi ve hedef proteinler için sırayla problandı. Tüm tekrarlar, eş zamanlı olarak sakrifiye edilen tek bir hayvan kohortundan elde edildi. Bir hedef proteinin moleküler ağırlığı GAPDH'ninkine çok yakın olduğunda (<5 kDa fark), sinyal çakışmasını önlemek için bağımsız membranlar üzerinde analiz edildiler. Doğru kantifikasyon sağlamak amacıyla, her membran münhasıran ya hedef protein ya da GAPDH için problandı. Şu primer antikorlar kullanıldı: GAPDH poliklonal antikor (1:5000), CMKLR1 poliklonal antikor (1:1000), Wnt5a poliklonal antikor (1:1000), TP53 poliklonal antikor (1:1000), AP-1 monoklonal antikor (1:5000) ve PPAR gamma (PPAR-γ) poliklonal antikor (1:1000). Toplam proteinler, hücre lizini ve ardından santrifügasyon ile elde edildi. Protein konsantrasyonları, BCA analizi kullanılarak belirlendi. Ekstre edilen proteinler, %12'lik ayırıcı jel kullanılarak SDS-PAGE ile ayrıştırıldı ve ardından membranlara transfer edildi. Membranlar, %5 yağsız süt içeren TBST ile bloke edildi ve uygun primer antikorlarla 4 °C'de gece boyunca inkübe edildi. Yıkamanın ardından membranlar, 1:10.000 dilüsyonda HRP-konjuge anti-rabbit veya anti-mouse sekonder antikorlarla inkübe edildi. Son olarak, protein bantları kemilüminesans görüntüleme yoluyla görselleştirildi ve analiz edildi. Görselleştirme ve veri işleme sırasında, ilgisiz moleküler ağırlık bölgelerini çıkarmak için blotlar yatay olarak kırpıldı ve şeritler arası alanlar kaldırılmadan tüm örnek şeritleri korundu. İlgisiz jel bölgelerini çıkarmak için yapılan kırpma sırasında hafif kenar bozulmaları meydana gelmiş olabilir.
16S rDNA sekanslama analizi ile bağırsak mikrobiyotasının tespiti
Terminal prosedürler öncesinde her fareden taze dışkı örnekleri toplandı. Spontane defekasyona izin vermek için fareler 10–15 dk boyunca tek tek steril kafeslere yerleştirildi. Dışkı peletleri steril penslerle hemen toplandı, steril 1,5 mL tüplere aktarıldı, sıvı azot ile şok donduruldu ve DNA ekstraksiyonuna kadar -80 °C'de saklandı. Çapraz kontaminasyonu minimize etmek için tüm prosedürler steril koşullar altında gerçekleştirildi. Mikrobiyal bütünlüğü sağlamak için defekasyon ile dondurma arasındaki süre 10 dk içinde tutuldu. Fekal genomik DNA (gDNA) örnekleri, Fecal gDNA ekstraksiyon kiti kullanılarak saflaştırıldı ve ardından 8F (5’-AGAGTTTGATCATGGCTCAG-3’) ve 1492R (5’-CGGTTACCTTGTTACGACTT-3’) evrensel primerleri ile polimeraz zincir reaksiyonu (PCR) aracılığıyla tam uzunluktaki 16S rDNA geni amplifikasyonu yapıldı. PCR ürünleri daha sonra agaroz jel elektroforezi ile analiz edildi, saflaştırıldı ve sonraki uygulamalar için miktar tayini yapıldı. Yüksek kapasiteli sekanslama, Nanopore GridION sekanslayıcıda gerçekleştirildi. Veri analiz süreci; baz çağırma (basecalling), veri kalite kontrolü, tür anotasyonu, filogenetik ağaç oluşturma, topluluk analizi, Alfa ve Beta çeşitlilik analizi, farklı bolluktaki türlerin analizi ve topluluk fonksiyonu tahmini aşamalarını içeriyordu. Analiz sırasında NanoFilt, Usearch, R programlama dili, Python ve SILVA veri tabanı gibi çeşitli araçlar ve veri tabanları kullanıldı.
Bağırsak-retina ekseninin sistemik inflamasyon ve çok seviyeli bağırsak mikrobiyotası ile korelasyon analizi
Çok seviyeli bağırsak mikrobiyotası ile serum inflamatuar sitokinleri ve temel düzenleyici proteinler arasındaki potansiyel ilişkileri araştırmak için Luoning Bio-Cloud platformu kullanılarak korelasyon analizi gerçekleştirilmiştir. Başlangıçta, Kingdom, Phylum, Class, Order, Family, Genus ve Species seviyelerindeki tür bolluk verileri sekanslama sonuçlarından çıkarılmıştır. Serum inflamatuar sitokinleri ve protein ekspresyon seviyeleri dahil olmak üzere fizikokimyasal faktörler, bir çevresel faktör dosyasında derlenmiştir. Korelasyonların güvenilirliğini ve görselleştirilmesini sağlamak amacıyla, mikrobiyal bolluk ile klinik ölçüm birimleri arasındaki ölçek farklarını gidermek için veriler normalizasyona tabi tutulmuştur. Korelasyon katsayıları (R-değerleri) ve bunlara karşılık gelen anlamlılık seviyeleri (P-değerleri) hesaplanmıştır. Sonuçlar, renk gradyanlarının korelasyonun gücünü ve yönünü belirttiği (kırmızı pozitif korelasyonu, mavi negatif korelasyonu temsil eder) ve yıldızların (**) istatistiksel anlamlılığı (P < 0.01) gösterdiği bir korelasyon ısı haritası kullanılarak görselleştirilmiştir.
İstatistiksel yöntemler
Tüm istatistiksel analizler ve görselleştirmeler GraphPad Prism kullanılarak gerçekleştirilmiştir. Normal dağılıma uyan veriler için ortalamaların karşılaştırılmasında t-testi kullanılmıştır. Verilerin normalden saptığı durumlarda Kruskal-Wallis testi uygulanmıştır. Değişkenler arasındaki ilişkiler için Spearman veya Pearson korelasyonu yapılmıştır. Tüm istatistiksel testler çift yönlü olarak yürütülmüş ve istatistiksel anlamlılık düzeyi 0,05 olarak belirlenmiştir.
Sonuçlar
General situation of experimental animals
Blood glucose levels were significantly elevated in the model group (27.21 ± 6.03 mmol/L) compared with the blank group (P < 0.001), indicating the successful induction of the DM model. During the study period, the experimental animals showed stable body weight, continuous water and food intake, normal urine output, body temperature, healthy fur and skin condition, and normal behavior during the experiment.
Composition and validation of QMG
QMG, a proprietary Chinese medicine that passed Phase III clinical trials, encompasses Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix], Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix], Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix], Lycium barbarum L. [Solanaceae; Lycii fructus], Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen], Leonurus japonicus Houtt. [Lamiaceae, Leonuri herba], Typha angustifolia L. [Typhaceae; Typhae pollen], Whitmania pigra Whitman [Hirudinidae; Hirudo]15. The detailed information, including the Chinese name, scientific name by MPNS validation, species, family, part used, representative bioactive compounds, was summarized in Table 1, which defined the QMG and provided a transparent, scientifically grounded basis for the formulas under investigation.
| No. | Chinese name | Scientific name by MPNS validation | Species | Family | Part Used | Representative bioactive compounds | |||||||
| 1 | HuangQi | Astragalus membranaceus (Fisch.) Bunge [Fabaceae, Astragali radix] | Astragalus mongholicus (Fisch.) Bunge | Fabaceae | Radix | Astragaloside IV, Calycosin | |||||||
| 2 | GeGen | Pueraria lobata (Willd.) Ohwi [Fabaceae, Puerariae lobatae radix] | Pueraria lobata (Willd.) | Fabaceae | Radix | Puerarin, Daidzin | |||||||
| 3 | DiHuang | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [Orobanchaceae; Rehmanniae radix] | Rehmannia glutinosa (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. | Orobanchaceae | Radix | Catalpol, Rehmannioside D | |||||||
| 4 | GouQiZi | Lycium barbarum L. [Solanaceae; Lycii fructus] | Lycium barbarum L. | Solanaceae | Fructus | Lycium barbarum polysaccharides, Betaine | |||||||
| 5 | JueMingZi | Senna obtusifolia (L.) H.S. Irwin & Barneby [Fabaceae; Cassiae semen] | Senna obtusifolia (L.) H.S. Irwin & Barneby | Fabaceae | Semen | Aurantio-obtusin, Emodin | |||||||
| 6 | Chong WeiZi | Leonurus japonicus Houtt. [Lamiaceae, Leonuri fructus] | Leonurus japonicus Houtt. | Lamiaceae | Fructus | Stachydrine, Leonurine | |||||||
| 7 | PuHuang | Typha angustifolia L. [Typhaceae; Typhae pollen] | Typha angustifolia L. | Typhaceae | Pollen | Isorhamnetin, Kaempferol | |||||||
| 8 | ShuiZhi | Whitmania pigra Whitman [Hirudinidae; Hirudo] | Whitmania pigra Whitman | Hirudinidae | Body | Hirudin, Calin | |||||||
Table 1: The composition and quality information of QMG ingredients. Detailed information on the composition and quality information of QMG ingredients, including the Chinese name, scientific name by MPNS validation, species, family, part used, and representative bioactive compounds.
QMG ameliorates the retinal morphology
As depicted in Figure 2A, the retina of the blank group exhibited a well-organized structure. The cellular arrangement was dense and orderly across all layers, with no evidence of structural disruption, exudation, or inflammatory infiltration. Compared with the blank group, retinal sections from the model group (Figure 2B) exhibited marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in RGC counts (P < 0.0001, Table 2, Figure 3A), and pronounced thinning of the total retinal thickness (P < 0.0001, Figure 3B). Notably, neovascular tufts penetrating the inner limiting membrane were observed (indicated by a red arrow), confirming successful establishment of the DR model. In contrast, the intervention group (Figure 2C) demonstrated significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001, Table 2, Figure 3A), and reversal of retinal thinning (P < 0.01, Table 2, Figure 3B). These data provide strong evidence for QMG as an effective intervention for DR.
QMG attenuates systemic inflammatory response in DR
Compared with the blank group, the expression levels of IL-1β, IL-6, and TNF-α were significantly upregulated in the model group (P < 0.0001), confirming that the modeling procedure successfully induced a marked inflammatory response. Conversely, compared with the model group, the expression levels of IL-1β, IL-6, and TNF-α were significantly downregulated in the intervention group (p < 0.0001), indicating a potent inhibitory effect of QMG on systemic inflammation. The serum concentrations of IL-1β, IL-6, and TNF-α across the three groups are summarized in Table 3 and illustrated in Figure 4A–C.
QMG modulates the CMKLR1-centered regulatory network along the gut–retina axis
As shown in Figure 5, Figure 6, Figure 7, and Supplementary Figure 2, the results of this study showed that in DR model mice, the expression levels of five key regulatory proteins—AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ—exhibited a consistent downward trend in both colonic and retinal tissues. Following QMG intervention, the expression of these proteins showed varying degrees of recovery, with some proteins reaching statistical significance. Specifically, after QMG intervention, the expression of AP-1, Wnt5a, and CMKLR1 in colonic tissue was significantly higher than that in the model group (P < 0.05), while in retinal tissue, the expression of CMKLR1 and TP53 was significantly higher than that in the model group (P < 0.01). These findings may suggest that AP-1 and Wnt5a are more sensitive responders in the colon, whereas TP53, as an apoptosis regulator, plays a more critical role in retinal neuroprotection. Notably, CMKLR1 was the only protein that achieved significant recovery in both tissues, indicating that QMG may facilitate bidirectional communication along the gut–retina axis through systemic regulation of CMKLR1 expression.
The consistent directionality of expression changes for these five proteins in both colonic and retinal tissues holds important biological significance. As the primary habitat of the gut microbiota, changes in colonic protein expression reflect the state of the intestinal microenvironment, while the retina is the effector organ of DR. The consistency of expression patterns between these two tissues strongly supports the gut–retina axis as an important participant in the pathophysiological processes of DR.
QMG restores and improves the composition, diversity, and function of gut microbiota
The results of the community composition
Hierarchical clustering analysis revealed distinct shifts in gut microbial composition and clustering at multiple taxonomic levels following QMG intervention. At the phylum level (Figure 8A), the model group exhibited a marked reduction in Firmicutes abundance and a significant enrichment of Bacteroidetes compared with the blank group, indicating a diabetes-driven shift in the Firmicutes/Bacteroidetes ratio; notably, the intervention restored the proportions of both Firmicutes and Bacteroidetes to levels approaching those of the blank group, accompanied by an elevated relative abundance of Proteobacteria. At the class level (Figure 8B), the model group manifested an elevation in Bacteroidia and Clostridia and a lessening in Bacilli and Erysipelotrichia compared with the blank group; in contrast, the intervention group showed restoration in Bacteroidia and Erysipelotrichia to levels approaching those of the blank group, accompanied by elevated relative abundance of Clostridia and Alphaproteobacteria. At the order level (Figure 8C), the model group demonstrated an elevated proportion of Bacteroidales, and a decreased proportion of Erysipelotrichales and Lactobacillales compared with the blank group; conversely, the intervention group restored the proportions of Bacteroidales and Erysipelotrichales to levels approaching those of the blank group, accompanied by an elevated relative abundance of Clostridiales. At the family level (Figure 8D), the model group presented a growth in Odoribacteraceae, Peptostreptococcaceae, Rikenellaceae, and Tannerellaceae, and a decrease in Erysipelotrichaceae, Lactobacillaceae, Muribaculaceae, and Ruminococcaceae compared with the blank group; in contrast, the intervention group downregulated the proportions of Odoribacteraceae and Peptostreptococcaceae compared with the model group; restored the proportions of Erysipelotrichaceae and Ruminococcaceae to levels approaching those of the blank group, accompanied by an elevated relative abundance of Lachnospiraceae. At the genus level (Figure 8E), the model group exhibited an upward trend in Odoribacter, Paeniclostridium, Alistipes, Parabacteroides, and Clostridioides, and a decrease trend in Lactobacillus, Faecalibaculum, Ruminococcus, Bacteroides, and Muribaculum compared with the blank group; notably, the intervention group downregulated the proportions of Odoribacter, Clostridioides, and Paeniclostridium compared with the model group; restored the proportions of Faecalibaculum and Ruminococcus to levels approaching those of the blank group; and increased the relative abundance of Lachnoclostridium, Sphingomonas, Flavonifractor, and Blautia. At the species level (Figure 8F), the model group showed an increase in Odoribacter splanchnicus, Clostridioides difficile, and Paeniclostridium sordellii, and a decrease in Faecalibaculum rodentium, Bacteroides salanitronis, Muribaculum intestinale compared with the blank group; in contrast, the intervention group downregulated the proportion of Odoribacter splanchnicus and Clostridioides difficile compared with the model group; restored the proportions of Faecalibaculum rodentium, and Muribaculum intestinale, accompanied by elevated relative abundance of Lachnoclostridium phocaeense, and Flavonifractor plautii. Collectively, these findings indicate that QMG restored gut microbial composition across multiple taxonomic levels, shifting the community structure toward a homeostatic state.
The results of the Alpha diversity and Beta diversity
As indicated by the Alpha diversity results (Figure 9A), the intervention group exhibited the highest Chao1, PD, Simpson, and Shannon indices, while the model group displayed the lowest, with the blank group showing intermediate levels. These findings underscore the detrimental impact of DR on gut microbiota diversity and demonstrate that QMG intervention effectively restores and enhances microbial richness and evenness in DR mice.
As indicated by the Beta diversity representative results (Figure 9B,C), the principal coordinates analysis (PCoA) plots revealed a distinct separation of microbial communities across the three groups, which was statistically supported by the Permutational Multivariate Analysis of Variance (PERMANOVA). Specifically, the Bray-Curtis-based analysis indicated a significant structural divergence (PERMANOVA: R2 = 0.67, P < 0.001), suggesting that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. Consistent with this, the analysis based on Weighted unique fraction (UniFrac) distance, which incorporates phylogenetic relationships between taxa, further confirmed the significant community shift (PERMANOVA: R2 = 0.58, P < 0.01).
As displayed by the Beta diversity results (Figure 9D), the non-metric multidimensional scaling (NMDS) ordination plot demonstrated a clear spatial clustering of samples according to the respective groups, with a stress value of 0.04. Given that a stress value below 0.05 is generally considered to represent an excellent representation of the community structure in a reduced-dimensional space, these results collectively suggest that the QMG intervention significantly altered the global composition of the gut microbiota.
The results of the differential abundance analysis
According to the linear discriminant analysis effect size (LEfSe) analysis (Figure 9E), the results revealed that Clostridia, Clostridiales, Lachnospiraceae, and Lachnoclostridium were remarkably enriched in the intervention group, whereas Odoribacteraceae, Odoribacter, Peptostreptococcaceae, and Paeniclostridium were notably enriched in the model group. Therefore, the above gut microbiota might be the primary differential microbiota responsible for the intergroup differences between the model and intervention groups.
The results of community function prediction
The predicted functional profiles at Level 2 and Level 3 showed distinct clustering patterns across the three groups (Figure 9F,G). Specifically, compared with the blank group, the model group exhibited a significant deviation in the relative abundance of metabolic pathways. Notably, this functional perturbation in the model group was largely ameliorated in the intervention group. The functional composition of the intervention group showed a substantial shift back towards the profile observed in the blank group, indicating that the QMG intervention effectively modulated the gut microbial functional structure. These results suggest that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state.
QMG modulates the gut–retina axis by coupling systemic inflammation and key regulatory proteins
Associations at global levels
At the kingdom level (Figure 10A–C), QMG improved the CMKLR1-centered network mainly by modulating Bacteria along the gut-retina axis. Specifically, Bacteria positively correlated with retinal PPAR-γ in the blank group (P < 0.01), but this association was not observed in the model group. Following QMG intervention, bacterial abundance positively correlated with retinal CMKLR1 and Wnt5a yet negatively correlated with colonic TP53 and PPAR-γ (P < 0.01).
At the phylum level (Figure 10D–F), QMG improved the CMKLR1-centered network mainly by modulating Candidatus and Bacteroidetes along the gut-retina axis. Specifically, the positive correlation between Candidatus and colonic CMKLR1 observed in the blank group was lost following DR induction, but was restored by QMG intervention, which was accompanied by a negative correlation with serum IL-1β and TNF-α, while positively correlated with retinal PPAR-γ, AP-1, TP53, colonic AP-1, and serum IL-6 (P < 0.01). Proteobacteria in the model group negatively correlated with colonic CMKLR1 (P < 0.01), a trend that persisted following QMG intervention. Meanwhile, Firmicutes were positively correlated with retinal CMKLR1 in the model group, whereas Bacteroidetes and Tenericutes were negatively correlated with retinal CMKLR1 (P < 0.01). Following QMG intervention, Bacteroidetes shifted to positive correlations with retinal PPAR-γ, AP-1, TP53, and colonic CMKLR1 (P < 0.01). Additionally, Actinobacteria positively correlated with retinal CMKLR1 and Wnt5a (P < 0.01).
At the class level (Figure 10G–I), QMG improved the CMKLR1-centered network mainly by regulating Cytophagia and Bacteroidia along the gut-retina axis. Specifically, Cytophagia and Chitinophagia negatively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Cytophagia, Bacteroidia, and Mollicutes negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriia and Epsilonproteobacteria, yet negatively with Tissierellia, Alphaproteobacteria, Clostridia, and Bacilli (P < 0.01). Following QMG intervention, Bacteroidia and Cytophagia positively correlated with colonic CMKLR1, retinal PPAR-γ, AP-1, TP53, colonic AP-1 and serum IL-6, whereas Mollicutes, Deltaproteobacteria, Alphaproteobacteria, and Gammaproteobacteria showed the opposite pattern (P < 0.01). Moreover, Chlamydiia, Actinobacteria, Tissierellia, Bacilli, and Negativicute negatively correlated with retinal CMKLR1 and Wnt5a, while Coriobacteriia exhibited the reverse correlation (P < 0.01).
At the order level (Figure 10J–L), QMG improved the CMKLR1-centered network mainly by modulating Bacteroidales, Bacillales, and Clostridiales along the gut–retina axis. Specifically, Cytophagales and Chitinophagales negatively correlated with retinal CMKLR1, whereas Marinilabiliales positively correlated with colonic CMKLR1 in the blank group (P < 0.01). In the model group, Mycoplasmatales, Cytophagales, Bacteroidales, and Marinilabiliales negatively correlated with retinal CMKLR1, while colonic CMKLR1 positively correlated with Flavobacteriales and Campylobacterales, yet negatively with Tissierellales, Bacillales, Sphingomonadales, Clostridiales, and Lactobacillales (P < 0.01). Following QMG intervention, Bacteroidales and Clostridiales positively correlated with colonic CMKLR1, AP-1, retinal PPAR-γ, AP-1, TP53, and serum IL-6, whereas Desulfovibrionales, Rhizobiales, Sphingomonadales, and Enterobacterales showed the opposite pattern (P < 0.01). Moreover, Eggerthellales and Coriobacteriales positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Chlamydiales, Thermoanaerobacterales, Corynebacteriales, Tissierellales, and Bacillales exhibited the reverse correlation (P < 0.01).
Associations at Fine levels
At the family level (Figure 11A–C), QMG improved the CMKLR1-centered network primarily by modulating Lachnospiraceae, Bacteroidaceae, and Lactobacillaceae along the gut–retina axis. Specifically, Ruminococcaceae negatively correlated with retinal CMKLR1, whereas Lachnospiraceae positively correlated with retinal CMKLR1 in the blank group (P < 0.01). In the model group, Peptostreptococcaceae positively correlated with retinal CMKLR1, while Tannerellaceae, Bacteroidaceae, Odoribacteraceae, and Lachnospiraceae showed the opposite pattern (P < 0.01). Meanwhile, colonic CMKLR1 positively correlated with Marinilabiliaceae, Rikenellaceae, and Flavobacteriaceae, yet negatively with Lachnospiraceae and Lactobacillaceae (P < 0.01). Following QMG intervention, Enterobacteriaceae, Sphingomonadaceae, and Oscillospiraceae negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Peptococcaceae, Bacteroidaceae, Muribaculaceae, and Rikenellaceae showed the opposite pattern (P < 0.01). Moreover, Veillonellaceae, Peptostreptococcaceae, Lactobacillaceae, and Ruminococcaceae negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Eggerthellaceae, Lachnospiraceae, and Hungateiclostridiaceae exhibited the reverse correlation (P < 0.01).
At the genus level (Figure 11D–F), QMG improved the CMKLR1-centered network primarily by modulating Lachnoclostridium, Clostridioides, and Bacteroides along the gut–retina axis. Specifically, Ruminococcus negatively correlated with retinal CMKLR1, whereas Lachnoclostridium showed the opposite pattern in the blank group (P < 0.01). In the model group, Lactobacillus and Sphingomonas negatively correlated with colonic CMKLR1, while Alistipes and Croceibacter positively correlated with colonic CMKLR1 (P < 0.01). Meanwhile, retinal CMKLR1 positively correlated with Paeniclostridium and Clostridioides, yet negatively with Mucinivorans, Intestinimonas, Flavonifractor, Parabacteroides, Bacteroides, Odoribacter, and Lachnoclostridium (P < 0.01). Following QMG intervention, Sphingomonas and Oscillibacter negatively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while positively correlating with serum IL-1β and TNF-α, whereas Bacteroides, Muribaculum, and Alistipes showed the opposite pattern (P < 0.01). Moreover, Dialister, Flavonifractor, Clostridioides, Ruminococcus, and Paeniclostridium negatively correlated with retinal CMKLR1 and Wnt5a, yet positively with colonic TP53 and PPAR-γ, whereas Pseudoclostridium, Lachnoclostridium, and Blautia exhibited the reverse correlation (P < 0.01).
At the species level (Figure 11G–I), QMG improved the CMKLR1-centered network primarily by modulating Clostridioides difficile, Alistipes shahii, and Paeniclostridium sordellii along the gut–retina axis. Specifically, Ruminococcus bicirculans and endosymbiont 'TC1' of Trimyema compressum negatively correlated with retinal CMKLR1, whereas Lactobacillus fermentum and Lactobacillus helveticus displayed the opposite pattern in the blank group (P < 0.01). In the model group, Croceibacter atlanticus, Alkalitalea saponilacus, Alistipes finegoldii, and Alistipes shahii positively correlated with colonic CMKLR1, while Sphingomonas panacis, Paeniclostridium sordellii, Clostridioides difficile, and Lactobacillus murinus positively correlated with retinal CMKLR1, yet Odoribacter splanchnicus, Mucinivorans hirudinis, Lachnoclostridium phocaense, Flavonifractor plautii, and Intestinimonas butyriciproducens showed the opposite pattern (P < 0.01). Following QMG intervention, Alistipes shahii and Muribaculum intestinale positively correlated with colonic CMKLR1, AP-1, and serum IL-6, as well as retinal PPAR-γ, AP-1, and TP53, while negatively correlating with serum IL-1β and TNF-α, whereas Sphingomonas panacis, Oscillibacter sp. PEA192, and Oscillibacter valericigenes exhibited the reverse pattern (P < 0.01). Moreover, Pseudoclostridium thermosuccinogenes, Lachnoclostridium phocaense, Bacteroides salanitronis, and Blautia sp. N6H1-15 positively correlated with retinal CMKLR1 and Wnt5a, yet negatively with colonic TP53 and PPAR-γ, whereas Paeniclostridium sordellii, Flavonifractor plautii, endosymbiont 'TC1' of Trimyema compressum, Clostridioides difficile, and Dialister pneumosintes showed the reverse correlation (P < 0.01). The detailed correlation results at kingdom, phylum, class, order, family, genus, and species levels are presented in Supplementary File 1.
DATA AVAILABILITY:
The 16S rDNA sequencing datasets generated and analyzed during the current study are available in the National Center for Biotechnology Information (NCBI) Sequence Read Archive (SRA) repository under the BioProject accession number: PRJNA1281561. All other data generated or analyzed during this study are included in this article.
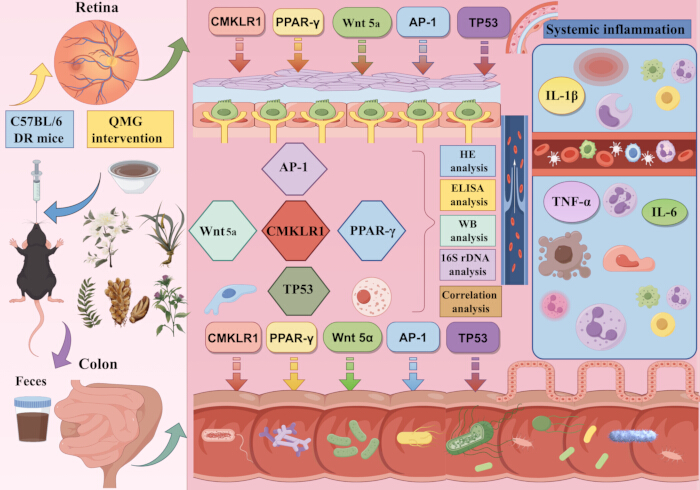
Figure 1: Graphical abstract. The graphical abstract shows the process of this study. Please click here to view a larger version of this figure.
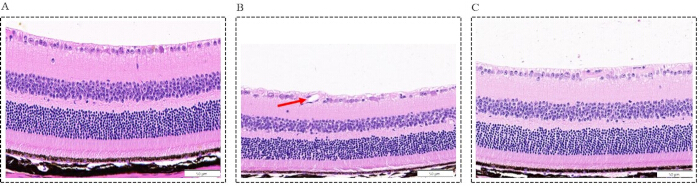
Figure 2: Morphological changes in the retina across the three groups (Scale bar = 50 µm, Magnification: ×400). (A) Blank group: representative photomicrographs of hematoxylin-eosin (HE)-stained retinal sections, showing an intact, well-organized retinal architecture with neatly arranged cellular layers; (B) Model group: representative photomicrographs of HE-stained retinal sections, showing marked structural disorganization, characterized by disordered cellular arrangement, a significant reduction in retinal ganglion cell (RGC) counts (P < 0.0001), pronounced thinning of the retinal thickness (P < 0.0001), and neovascular tufts penetrating the inner limiting membrane (indicated by a red arrow); (C) Intervention group: representative photomicrographs of HE-stained retinal sections, showing significant attenuation of histopathological abnormalities relative to the model group, as evidenced by restoration of retinal laminar architecture, partial recovery of RGC numbers (P < 0.001), and restoration of retinal thinning (P < 0.01). Please click here to view a larger version of this figure.
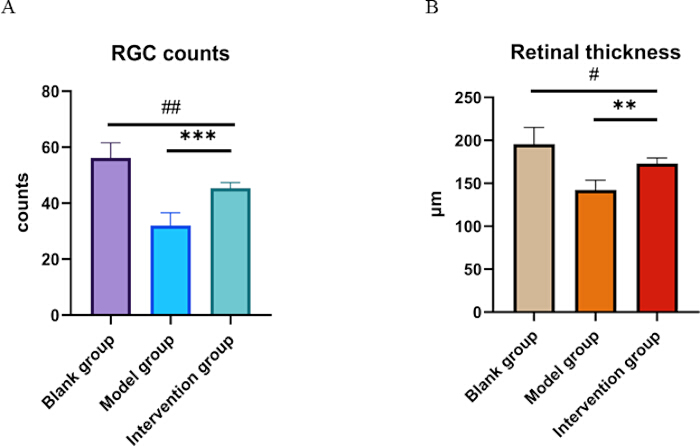
Figure 3: Histological quantification of RGC counts and retinal thickness. (A) Quantification of RGC counts in the ganglion cell layer. (B) Measurement of total retinal thickness (µm). Data are shown as mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01; compared with the model group: **P <0.01, ***P <0.001. Please click here to view a larger version of this figure.
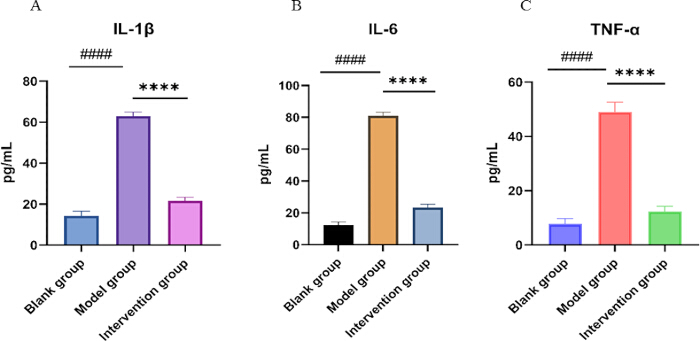
Figure 4: Serum concentrations of inflammatory cytokines in the three groups. Bar charts showing ELISA‑based quantification of serum IL‑1β (A), IL‑6 (B), and TNF‑α (C) levels in the blank control, model group, and intervention groups. Data are expressed as mean ± SD (n = 6 per group). Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001. Please click here to view a larger version of this figure.
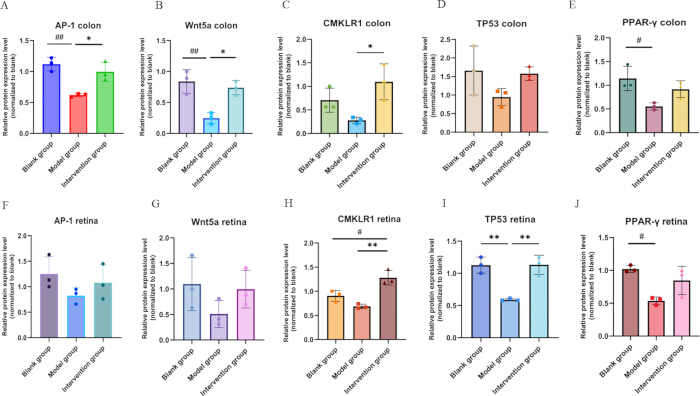
Figure 5: Bar chart of the expression levels of key regulatory proteins in the retina and colon. (A) Relative protein expression level (normalized to blank) of AP-1 in the colon (n = 3); (B) Relative protein expression level (normalized to blank) of Wnt5a in the colon (n = 3); (C) Relative protein expression level (normalized to blank) of CMKLR1 in the colon (n = 3); (D) Relative protein expression level (normalized to blank) of TP53 in the colon (n = 3); (E) Relative protein expression level (normalized to blank) of PPAR-γ in the colon (n = 3); (F) Relative protein expression level (normalized to blank) of AP-1 in the retina (n = 3); (G) Relative protein expression level (normalized to blank) of Wnt5a in the retina (n = 3); (H) Relative protein expression level (normalized to blank) of CMKLR1 in the retina (n = 3); (I) Relative protein expression level (normalized to blank) of TP53 in the retina (n = 3); (J) Relative protein expression level (normalized to blank) of PPAR-γ in the retina (n = 3). Compared with the blank group: #P < 0.05, ##P < 0.01; compared with the model group: *P < 0.05, **P < 0.01. Please click here to view a larger version of this figure.
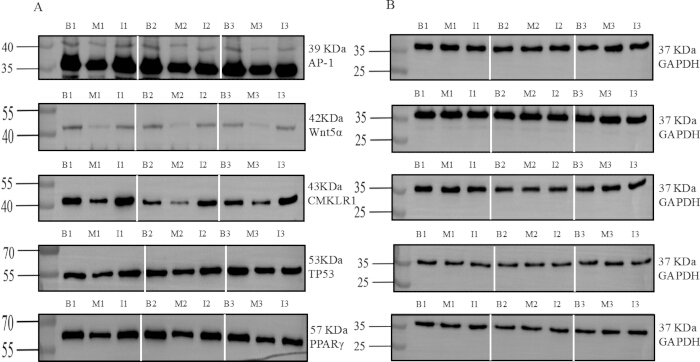
Figure 6: Representative WB grayscale blots of key regulatory proteins in the colon. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped Western blot (WB) images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
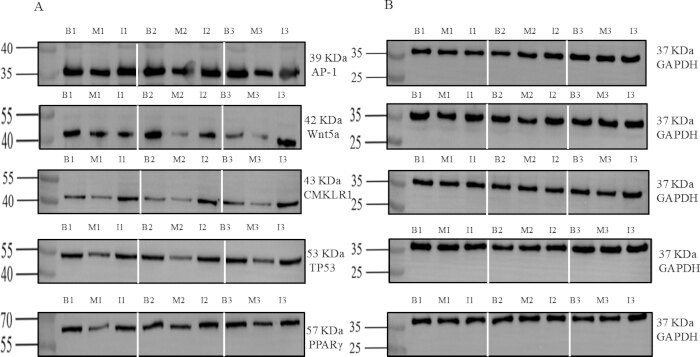
Figure 7: Representative WB grayscale blots of key regulatory proteins in the retina. (A) Target protein expression: AP-1, Wnt5a, CMKLR1, TP53, and PPAR-γ; (B) Loading control: GAPDH. Vertical white lines separate replicate sets (Rep1, Rep2, Rep3); Molecular weight markers (kDa) are indicated on the left, and protein names with corresponding kDa are shown on the right. Lanes are labeled as: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2 (Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). Full-length, uncropped WB images with visible molecular weight markers have been provided as Supplementary Figure 2. Please click here to view a larger version of this figure.
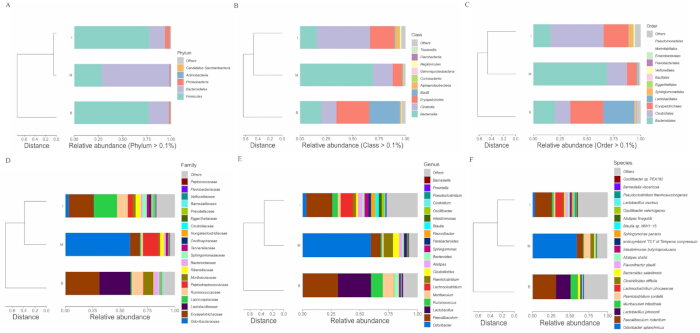
Figure 8: Hierarchical clustering of gut microbiota composition at different levels. Hierarchical clustering dendrogram based on Bray-Curtis dissimilarity among the blank control (B), model group(M), and intervention group (I). The branch length represents the degree of structural divergence. Stacked bar chart depicting the relative abundances of dominant phyla across the three groups. Phyla falling below the threshold are aggregated as “Others”. (A) Qiming granule (QMG) rebalances the gut microbiota composition at the phylum level; (B) QMG rebalances the gut microbiota composition at the class level; (C) QMG rebalances the gut microbiota composition at the order level; (D) QMG rebalances the gut microbiota composition at the family level; (E) QMG rebalances the gut microbiota composition at the genus level; (F) QMG rebalances the gut microbiota composition at the species level. Abbreviation: B, blank group; M, model group; I, intervention group. Please click here to view a larger version of this figure.
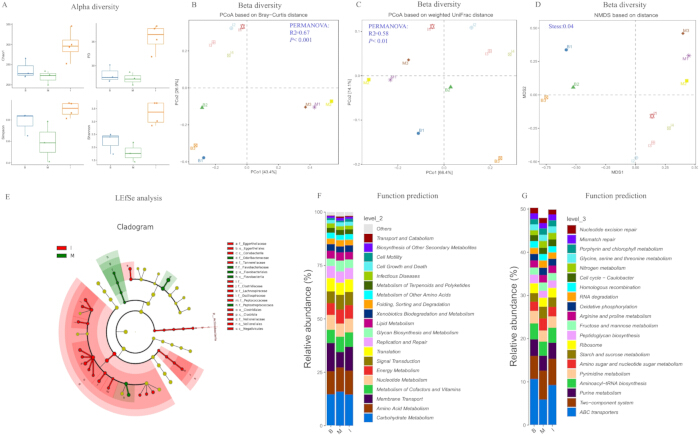
Figure 9: Analysis of gut microbiota diversity, differential abundance, and predicted functional pathways. (A) Alpha diversity analysis assessed by Chao1, PD, Simpson, and Shannon indices revealed that the intervention group exhibited higher microbial diversity than the model group, indicating that QMG treatment effectively restores gut microbial richness and evenness. (B) Beta diversity analysis assessed by principal coordinates analysis (PCoA) based on Bray-Curtis distance revealed significant differences among groups (PERMANOVA: R2=0.67, P < 0.001), indicating that the DR model and QMG intervention accounted for a substantial proportion of the variation in microbial community composition. (C) Beta diversity analysis assessed by PCoA based on weighted unique fraction (UniFrac) distance further confirmed the significant community shift (PERMANOVA: R2= 0.58, P < 0.01). (D) Beta diversity analysis assessed by non-metric multidimensional scaling (NMDS) ordination demonstrated a stress value of 0.04, suggesting that the QMG intervention significantly altered the global composition of the gut microbiota. (E) Cladogram of differential abundance analysis assessed by linear discriminant analysis effect size (LEfSe) revealed the primary differential microbiota between the model and intervention groups. Functional prediction of the gut microbiota at KEGG Level 2 (F) and KEGG Level 3 (G) suggested that the intervention not only reshaped the taxonomic composition and structure of the gut microbiota but also restored its functional metabolic capacity toward a homeostatic state. Please click here to view a larger version of this figure.
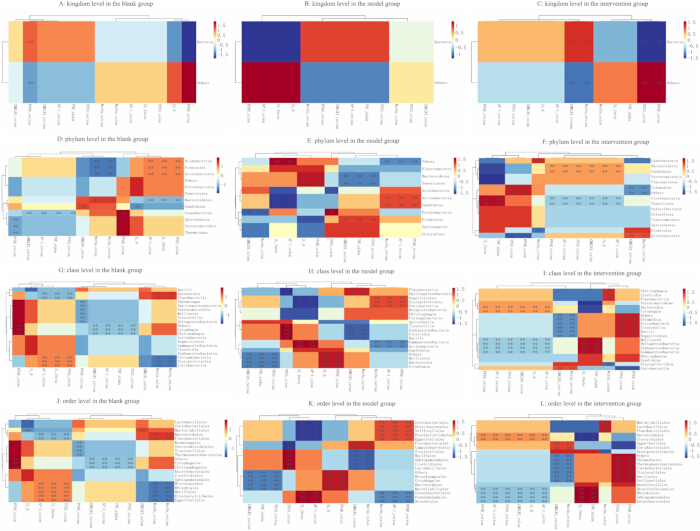
Figure 10: Global association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at kingdom level in the blank group; (B) Association of gut microbiota at kingdom level in the model group; (C) Association of gut microbiota at kingdom level in the intervention group; (D) Association of gut microbiota at phylum level in the blank group; (E) Association of gut microbiota at phylum level in the model group; (F) Association of gut microbiota at phylum level in the intervention group; (G) Association of gut microbiota at class level in the blank group; (H) Association of gut microbiota at class level in the model group; (I) Association of gut microbiota at class level in the intervention group; (J) Association of gut microbiota at order level in the blank group; (K) Association of gut microbiota at order level in the model group; (L) Association of gut microbiota at order level in the intervention group. Please click here to view a larger version of this figure.
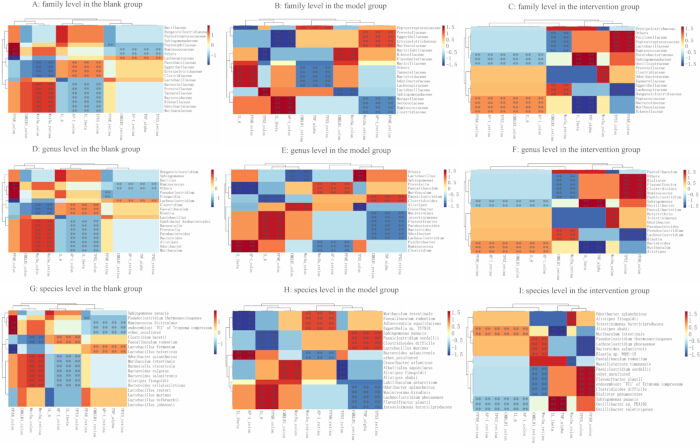
Figure 11: Fine association of gut microbiota with inflammatory and regulatory factors. (A) Association of gut microbiota at the family level in the blank group; (B) Association of gut microbiota at the family level in the model group. (C) Association of gut microbiota at family level in the intervention group; (D) Association of gut microbiota at genus level in the blank group; (E) Association of gut microbiota at genus level in the model group; (F) Association of gut microbiota at genus level in the intervention group; (G) Association of gut microbiota at species level in the blank group; (H) Association of gut microbiota at species level in the model group;(I) Association of gut microbiota at species level in the intervention group. Please click here to view a larger version of this figure.
| Groups (n = 6) | RGCs counts | Retinal thickness |
| Blank group | 56.17 ± 5.382 | 195.50 ± 19.54 μm |
| Model group | 32.00 ± 4.561#### | 142.30 ± 11.34 μm#### |
| Intervention group | 45.33 ± 2.066 ##*** | 173.00 ± 6.575 μm#** |
| p | <0.0001 | <0.0001 |
Table 2: Quantitative analysis of RGC counts and retinal thickness in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Compared with the blank group: #P <0.05, ##P <0.01, ####P <0.0001; compared with the model group: **P <0.01, ***P <0.001.
| Groups (n = 6) | IL-1β | IL-6 | TNF-α |
| Blank group | 14.31 ± 2.28 | 12.48 ± 1.774 | 7.728 ± 2.048 |
| Model group | 62.88 ± 2.01#### | 80.95 ± 2.247#### | 49.00 ± 3.647#### |
| Intervention group | 21.7 ± 1.654**** | 23.27 ± 2.074**** | 12.35 ± 1.891**** |
| P | <0.0001 | <0.0001 | <0.0001 |
Table 3: Serum expression levels of IL-1β, IL-6, and TNF-α in the three experimental groups. Data are presented as Mean ± SD (n = 6 per group). Cytokine concentrations were determined by enzyme‑linked immunosorbent assay (ELISA) and are reported in pg/mL. Compared with the blank group: ####P < 0.0001; compared with the model group: ****P < 0.0001.
Supplementary Figure 1: Experimental Design and Study Timeline. Schematic overview of the experimental design.Please click here to download this file.
Supplementary Figure 2: Original, full-length, uncropped WB images corresponding to Figure 6 and Figure 7. Raw images without modification contain all molecular weight markers in colon and retina blots for AP-1, Wnt5a, TP53, CMKLR1, PPAR-γ, and loading control GAPDH. Molecular weight markers (kDa) are indicated. Lanes are labeled: B1 (Blank group 1), M1 (Model group 1), I1 (Intervention group 1); B2 (Blank group 2), M2(Model group 2), I2 (Intervention group 2); B3 (Blank group 3), M3 (Model group 3), I3 (Intervention group 3). The original blots were not subjected to high-contrast adjustments.Please click here to download this file.
Supplementary File 1: Detailed correlation analyses of gut microbiota with inflammatory and regulatory factors.Please click here to download this file.
Tartışma
Diyabetik retinopati (DR), kronik hiperglisemi, inflamasyon ve metabolik disregülasyon tarafından tetiklenen karmaşık bir nörovasküler komplikasyondur22. Amerikan Oftalmoloji Akademisi, DR'yi neovaskülarizasyonun başlangıcı ile karakterize edilen non-proliferatif DR ve proliferatif DR olarak kategorize eder23. Mevcut terapötik stratejilerin sınırlılıkları göz önüne alındığında, yeni mekanizmaların araştırılması DR'nin tedavisi için gelecek vaat eden bir yön olarak ortaya çıkmıştır. Özellikle, son dönemdeki buluşlar bağırsak-retina aksını DR için kritik ancak yeterince değerlendirilmemiş bir terapötik hedef olarak tanımlamıştır. İlk olarak 2017 yılında Sheldon Rowan tarafından tanıtılan ve tanımlanan bağırsak-retina aksı6, oküler hastalıkların patofizyolojik süreçlerinde popülerlik kazanmıştır. Bununla birlikte, bağırsak-retina aksının DR'nin patogenezi ve progresyonundaki rolünün altında yatan spesifik moleküler mekanizmalar hala belirsizliğini korumaktadır ve bu durum, bu aksı hedefleyen terapötik stratejilerin geliştirilmesini ve klinik uygulamasını engellemektedir.
Bu çalışmada, QMG'nin DR'ye karşı etkinliğini ve temel mekanizmalarını sistematik olarak değerlendirdik. Bu bulgular; QMG'nin retinal histopatolojik hasarı hafiflettiğine, sistemik inflamasyonu baskıladığına, bağırsak mikrobiyota homeostazını geri kazandırdığına ve hem kolonda hem de retinada kilit düzenleyici proteinleri (CMKLR1 merkezli düzenleyici ağ) çift yönlü olarak modüle ettiğine dair ön kanıtlar sunarak, QMG'nin bağırsak-retina ekseninin potansiyel bir modülatörü olduğunu ortaya koymaktadır. Kronik, düşük dereceli sistemik inflamasyon, DM'nin karakteristik bir özelliğidir ve retinal mikrovasküler hasarın ve DR progresyonunun temel itici gücüdür24. ELISA sonuçları, DR model farelerinde serum IL-1β, IL-6 ve TNF-α seviyelerinin anlamlı derecede yükseldiğini (P < 0.0001) göstererek, DR durumunda güçlü bir sistemik inflamatuar yanıtın varlığını doğrulamıştır. Bu sitokinlerin kontrolsüz salınımı, kan-retina bariyerini bozabilir, RGC apoptozunu teşvik edebilir ve patolojik neovaskülarizasyonu tetikleyebilir. QMG müdahalesini takiben, bu sitokinlerin seviyeleri anlamlı derecede azalmış (P < 0.0001), retinal yapısal bütünlük geri kazanılmış, RGC sağkalımı artmış ve retinal kalınlık korunmuştur. Bu sonuçlar, QMG'nin retinal koruyucu etkilerinin, güçlü sistemik anti-inflamatuar aktivitesi ile yakından ilişkili olduğunu göstermektedir. Özellikle, bu sistemik anti-inflamatuar etkinin tek başına gerçekleşmediği, aksine QMG aracılı bağırsak mikrobiyota modülasyonu ve kolondaki kilit düzenleyici proteinlerin restorasyonu ile eşleştiği görülmektedir; bu da QMG'nin terapötik etkilerini bir "bağırsak-sistemik inflamasyon-retina" ekseni üzerinden yürütüyor olabileceğini düşündürmektedir.
QMG'nin bağırsak-retina ekseni boyunca anti-DR etkilerini gösterdiği moleküler mekanizmayı daha detaylı açıklığa kavuşturmak için, CMKLR1 merkezli düzenleyici ağın (CMKLR1, Wnt5a, TP53, AP-1 ve PPAR-γ dahil) protein ekspresyonu hem kolon hem de retina dokularında incelenmiştir. Sonuçlar, DR model indüksiyonundan sonra beş proteinin tamamının hem kolonda hem de retinada tutarlı bir azalma eğilimi gösterdiğini ortaya koymuş ve bu durum, DR koşulları altında bağırsak ve retina arasındaki sinyal iletişiminin sistemik olarak engellenmiş olabileceğini düşündürmüştür. QMG müdahalesini takiben, hem kolonda hem de retinada CMKLR1 belirgin şekilde yukarı regüle edilmiş (P < 0.05 ve P < 0.01), bu da QMG'nin CMKLR1'in sistemik aktivasyonu yoluyla bağırsak-retina ekseni boyunca çift yönlü iletişimi geri yükleyebileceğini göstermiştir. Ek olarak QMG, kolonda AP-1 ve Wnt5a ekspresyonunu, retinada ise TP53 ekspresyonunu belirgin şekilde geri yüklemiş; bu durum, farklı proteinlerin eksen boyunca dokuya özgü fonksiyonel roller oynayabileceğini önermiştir: AP-1 ve Wnt5a kolonda QMG'ye karşı daha hassas yanıtlar verirken, bir apoptoz düzenleyici olan TP53, retinal nöroproteksiyonda daha kritik bir rol oynamaktadır. Daha ileri korelasyon analizleri, AP-1, CMKLR1, PPAR-γ ve Wnt5a'nın kolondaki ekspresyonunun sistemik inflamatuar sitokin seviyeleriyle (IL-1β, IL-6, TNF-α) belirgin şekilde negatif korelasyon gösterdiğini (P < 0.05 ile P < 0.001 arası), buna karşın serum sitokinleri ile retinal protein ekspresyonu arasında doğrudan bir korelasyon gözlenmediğini ortaya koymuştur. Bu tutarsızlık önemli mekanistik çıkarımlar taşımaktadır: QMG, öncelikle kolondaki kilit düzenleyici proteinlerin ekspresyonunu geri yükleyerek bağırsak mikroçevresi üzerinde etki ediyor ve böylece sistemik inflamasyonu baskılıyor olabilir; buna karşılık retinal proteinlerin geri kazanımı, sistemik inflamatuar faktörler tarafından doğrudan aracılık edilmekten ziyade, bağırsak mikrobiyotası türevli metabolitlerin dolaşıma geçerek retinal sinyal kaskadlarını uzaktan düzenlemesi gibi dolaylı yollarla gerçekleşiyor olabilir. Bu bulgu, bir “bağırsak-sistemik inflamasyon-retina” aksiyel düzenleme modelini desteklemekte ve QMG'nin bağırsak-retina ekseni üzerinden DR üzerindeki terapötik etkisine dair temel mekanistik kanıtlar sunmaktadır. İncelenen hedefler arasında CMKLR1, hem retinal hem de kolonic dokularda belirgin değişiklikler göstermiş ve bağırsak-retina eksenini bağlayan potansiyel bir birincil biyobelirteç olarak öne çıkmıştır. Önceki çalışmalarda CMKLR1'in glikolipid metabolizması, DR şiddeti ve bağırsak mikrobiyotası modülasyonu ile ilişkili olduğu bildirilmiş25,26,27,28,29,30, bu da bağırsak-retina ekseni boyunca farklı ekspresyonunun birden fazla patolojik sürece katılımını yansıtabileceğini düşündürmüştür. Bu bulgular, CMKLR1'i DR tanısı ve terapötik müdahale için gelecek vaat eden bir aday biyobelirteç olarak konumlandırmakta ve daha ileri mekanistik doğrulamayı gerekli kılmaktadır.
CMKLR1 bağırsak-retina ekseninde merkezi bir düğüm görevi görürken, QMG'nin terapötik etkisi; Wnt5a, TP53, AP-1 ve PPAR-γ'nin temel sinerjik destek sağladığı çok boyutlu bir düzenleyici ağ aracılığıyla gerçekleştirilir. Wnt sinyal yolu; epitel bütünlüğü, inflamasyon modülasyonu ve mikrobiyota aracılı mukozal koruma dahil olmak üzere intestinal epitel homeostazı ve kolon sağlığı için kritik öneme sahiptir31,32,33,34. PPAR-γ inflamatuar yanıtları düzenler; DR'de lipid aktive fagositleri inhibe ettiği ve mikroglial modülasyon yoluyla fotoreseptör sağkalımını desteklediği gösterilmiştir35,36,37. AP-1, desoksikolik asit gibi bağırsak mikrobiyal metabolitlerinin inflamatuar ve immün homeostazı etkilediği bir transkripsiyon faktörü olarak görev yapar38,39,40,41. TP53 ise hiperglisemik koşullar altında otofaji, apoptoz ve retinal nöronal hasarda rol oynar42,43,44,45. Topluca bakıldığında, bu sinyal düğümleri bağırsak mikrobiyal dinamiklerini retinal patolojiye bağlayan birbirine bağlı bir ağ oluşturur ve bu durum bizi, QMG'nin bağırsak-retina ekseni boyunca bu ağı modüle edip etmediğini araştırmaya yöneltmiştir.
Sistemik inflamasyonun düzenlendiği temel bir mekanizma bağırsak ekosisteminden kaynaklanmaktadır. 16S rDNA dizileme analizi, model grubunda; Firmicutes/Bacteroidetes oranındaki belirgin bir dengesizlik, potansiyel patojenik taksonların (örneğin, Odoribacter ve Clostridioides) zenginleşmesi ve faydalı taksonların (örneğin, Lactobacillus ve Faecalibaculum) azalması ile karakterize, diyabet kaynaklı yapısal bir disbiyoz olduğunu ortaya koymuştur. Dikkat çekici bir şekilde, QMG tedavisi şu yollarla bu patolojik değişiklikleri tersine çeviren bir mikrobiyota onarıcı ajan olarak işlev görmüştür: (i) Mikrobiyal homeostazın geri kazanılması: temel familya ve cinslerin (Faecalibaculum, Ruminococcus, Erysipelotrichaceae) oranlarının kontrol grubu baz çizgisine doğru normalize edilmesi; (ii) Patobiyontların hedeflenmiş modülasyonu: diyabetle ilişkili Odoribacter splanchnicus ve Clostridioides difficile aşırı çoğalmasının baskılanması; (iii) Faydalı topluluk oluşumunun teşviki: Lachnoclostridium, Blautia ve Flavonifractor plautii gibi anti-inflamatuar veya metabolit üreten taksonların proliferasyonunun indüklenmesi. Ayrıca, çok seviyeli çeşitlilik analizleri ve Spearman korelasyon analizi, QMG müdahalesinin, bağırsak-retina ekseni boyunca koruyucu konakçı-mikrop etkileşimlerini destekleyecek şekilde temel çok seviyeli kompozisyonu etkili bir biçimde yeniden dengelediğini göstermiştir. Bu sonuç, yalnızca QMG'nin bağırsak mikrobiyotası üzerindeki düzenleyici etkisini doğrulamakla kalmaz, aynı zamanda QMG'nin sistemik inflamasyonu ortaklaşa baskılamak ve böylece diyabetik retinopatiyi hafifletmek için mikrobiyota yeniden şekillendirmesini temel düzenleyici proteinlerin (örneğin, IL-6, TP53) aktivitesi ile koordine ettiği potansiyel bir terapötik stratejiyi ortaya koymaktadır.
Güncel çalışmalar sahip olmak Geleneksel Çin Tıbbı'nın (TÇT), tek hedefli farmasötik ajanlardan farklı olarak, mikrobiyota-metabolizma-bağışıklık ekseni üzerinde çok hedefli bir düzenleme gerçekleştirdiği doğrulanmıştır46Biriken kanıtlar, QMG'nin DR ve ilgili oküler durumlardaki terapötik potansiyelini ortaya koymuştur. Çok merkezli, randomize kontrollü bir çalışma, QMG'nin DR hastalarında retinal arteriovenöz dolaşım süresini önemli ölçüde kısalttığını göstermiş; bu durum, retinal kan akımında iyileşmeye ve hipoksinin azalmasına işaret etmiştir.47Meta-analizler, diyabetik makula ödeminde konvansiyonel tedavi ile kombine edilen QMG'nin; merkezi makula kalınlığını, görme keskinliğini ve genel etkinlik oranını anlamlı derecede iyileştirdiğini doğrulamıştır.48ve ayrıca kuru göz hastalığı olan hastalarda gözyaşı filmi kırılma süresinin uzaması ve gözyaşı salgısının artması49NPDR ile ilişkili sinir hasarı olan hastalarda, QMG'nin retinal sinir lifi tabakası kalınlığını ve foveal avasküler zon alanını koruma konusunda kalsiyum dobesilat ile karşılaştırıldığında daha düşük olmadığı (non-inferior olduğu) gösterilmiştir.50Mekanistik çalışmalar, QMG'nin Müller hücresi piroptozunun inhibisyonu ve P2X7R/NLRP3 yolu üzerinden immün inflamasyonun engellenmesi dahil olmak üzere birden fazla yolak aracılığıyla retinal hasara karşı koruma sağladığını ortaya koymuştur.51, apoptozu azaltmak için PI3K/Akt sinyal yolağının aktivasyonu ve kan-retina bariyeri bütünlüğünü korumak için sıkı bağlantı proteinlerinin modülasyonu52Ağ farmakolojisi analizleri, QMG içerisinde DR ile ilişkili hedefler üzerinde sinerjik etki gösteren çok sayıda biyoaktif bileşik tespit etmiştir.16ve klinik çalışmalar herhangi bir ciddi yan etki bildirmemiş olup, bu durum olumlu bir güvenlik profiline işaret etmektedir50QMG'nin terapötik etkinliği; kuersetin, kaempferol, izorhamnetin, formononetin ve ... dahil olmak üzere aktif bileşenlerinin sinerjik etkilerine bağlanmaktadır. βIL-6 ve TNF-α'yı hedefleyerek kolektif olarak anti-inflamatuar, antioksidan ve anti-apoptotik etkiler gösteren β-sitosterol,α, TP53 ve AP-153,54,55,56,57,58,59Bu çalışma, QMG'nin koruyucu etkilerinin aynı zamanda bağırsak-retina aksının modülasyonu aracılığıyla gerçekleştiğini; özellikle bağırsak mikrobiyota homeostazının yeniden sağlanması ve sistemik inflamasyonu baskılayıp retinal hasarı hafifletmek için CMKLR1 merkezli moleküler ağın düzenlenmesi yoluyla etkili olduğunu göstererek bu bilgileri genişletmektedir.
Bu çalışmanın bazı sınırlamaları kaydedilmeli ve gelecekteki araştırmalarda daha detaylı incelenmelidir. İlk olarak, bağırsak mikrobiyal değişiklikleri ile retinal fonksiyonel iyileşmeler arasındaki nedensel ilişkinin daha fazla doğrulanması gerekmektedir. QMG kaynaklı mikrobiyota yeniden şekillenmesi ile koruyucu retinal fenotipler arasında güçlü korelasyonlar gözlemlenmiş olsa da, dışkı mikrobiyota transplantasyonu, sterile (germ-free) hayvan modelleri veya antibiyotikle tetiklenen mikrobiyota tükenmesi gibi doğrudan nedensel çıkarım deneyleri, gelecekteki çalışmalarda bu ilişkiyi onaylamak adına değerli olacaktır. İkinci olarak, mikrobiyal kompozisyonu belirlemek için 16S rDNA dizileme yöntemi kullanılmıştır; bu yöntem cins düzeyinde ve üzerinde yeterli taksonomik çözünürlük sağlasa da, suş düzeyinde fonksiyonel bilgi veya kesin metabolik potansiyel sunma kapasitesi sınırlıdır. QMG tarafından düzenlenen temel mikrobiyal fonksiyonel yolakları belirlemek için sonraki çalışmalarda metagenomik dizileme veya metabolomik analizler yürütülecektir. Üçüncü olarak, mikrobiyal değişiklikler yalnızca deneysel bitiş noktasında değerlendirilmiş olup, bu durum QMG müdahalesi sırasında mikrobiyota yeniden yapılanmasının zamansal evriminin dinamik olarak takip edilmesini engellemiştir. Gelecekteki çalışmalarda yapılacak boylamsal örneklemeler, QMG kaynaklı mikrobiyota yeniden şekillenmesinin kinetiğinin ve retinal koruma ile olan zamansal ilişkisinin belirlenmesine yardımcı olacaktır. Dördüncü olarak, histopatolojik analizde retinal incelme, RGC kaybı ve neovasküler tutamlar gözlemlenmiş olsa da, gelecekteki çalışmalar çoklu doz STZ enjeksiyon protokollerini ve genetik diyabetik modelleri araştırmalı ve ayrıca DR fenotipinin daha kapsamlı bir karakterizasyonunu sunmalıdır.
Özetle, bu çalışma QMG'nin, CMKLR1 merkezli moleküler ağı gut-retina ekseni aracılığıyla sistemik inflamasyonla ilişkilendirerek DR'yi hafiflettiğini göstermektedir. QMG'nin etki mekanizması üç düzeyde ortaya çıkmaktadır: mikrobiyal düzeyde, QMG diyabetin neden olduğu bağırsak disbiyozunu geri çevirir (örneğin, Firmicutes/Bacteroidetes oranını yeniden düzenler, Odoribacter ve Clostridioides türlerini baskılar ve Faecalibaculum gibi faydalı bakterileri teşvik eder); moleküler düzeyde, QMG CMKLR1/Wnt5a/PPAR-γ/AP-1/TP53 yolağını düzenler ve sistemik inflamasyonu hafifletir; doku düzeyinde ise QMG retinal morfolojiyi korur. Bu bulgular, QMG'nin DR için gelecek vaat eden bir gut-retina terapötik stratejisi olduğunu desteklemekte ve TCM'nin diyabetik komplikasyonların tedavisinde uygulanması için mekanik bir temel sağlamaktadır.
Açıklamalar
Yazarlar, bu makalede rapor edilen çalışmayı etkilediği düşünülebilecek herhangi bir bilinen rakip finansal çıkarı veya kişisel ilişkisi olmadığını beyan ederler.
Teşekkürler
Yazar, bu araştırmayı tamamlamak için büyük destek ve yardım sağlayan tüm ekip üyelerine teşekkürlerini sunar .
Bu araştırma, Çin Ulusal Doğa Bilimleri Vakfı (Hibe Numarası: 82474580) ve Chengdu Geleneksel Çin Tıbbı Üniversitesi Hastanesi Hastane Vakfı Serbest Araştırma Projesi (No. 23ZYTS1601) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| AP-1 monoklonal antikoru | Proteintech | 66313-1-IG | 1:5000 |
| CMKLR1 poliklonal antikoru | Affinity | AF5291 | 1:1000 |
| GAPDH poliklonal antikoru | Affinity | AF7021 | 1:5000 |
| GoatAnti-Mouse IgG(H+L) HRP | MULTI SCIENCES | GAM0072 | 1:10000 |
| GoatAnti-Rabbit IgG(H+L) HRP | MULTI SCIENCES | GAR0072 | 1:10000 |
| GraphPad Prism | / | versiyon 9.5 | |
| Image-Pro Plus | Media Cybernetics, Inc., Rockville, MD, USA | versiyon 6.0 | |
| Luoning Bio-Cloud platformu | http://www.biomediv.cn/login.html | ||
| Mouse IL-1β(Interleukin 1 Beta) ELISA Kiti | Elabscience | E-EL-M0037 | Serum sitokin tayini |
| Mouse IL-6(Interleukin-6) ELISA Kiti | Elabscience | E-EL-M0044 | Serum sitokin tayini |
| Mouse TNF-α(Tumor Necrosis Factor Alpha) ELISA Kiti | Elabscience | E-EL-M3063 | Serum sitokin tayini |
| NanoFilt | / | versiyon 2.7.1 | |
| Nanopore GridION sekanslama cihazı | Oxford Nanopore Technologies | https://store.nanoporetech.com/gridion.html | |
| Pannoramic SCAN II | 3DHISTECH Pannoramic SCAN tarayıcı | https://www.3dhistech.com/scanners/pannoramic-scan-ii-digital-scanner/ | |
| PPAR gamma (PPAR-γ) poliklonal antikoru | ImmunoWay | bs-0530R | 1:1000 |
| Python | / | versiyon 3.7.4 | |
| Qiming Granule | Zhejiang Sansheng Mandi Pharmaceutical Co., Ltd. | Chinese National Drug Approval No. Z20090036 | 0.9 g/kg, oral gavage |
| R programlama dili | / | versiyon 4.0.3 | |
| SILVA veri tabanı | / | versiyon 138 | |
| Streptozotosin (STZ) | Sigma-Aldrich | S0130 | 35 mg/kg, i.p. |
| TP53 poliklonal antikoru | Abcam | ab131442 | 1:1000 |
| Usearch | / | versiyon 10.0.240 | |
| Wnt5a poliklonal antikoru | Proteintech | 55184-1-AP | 1:1000 |
| Zymo Research BIOMICS DNA Microprep Kiti | Zymo Research | D4301 | Fekal gDNA ekstraksiyonu |
Kaynaklar
- Lei C, et al. Homocysteine and diabetic retinopathy. Exp Eye Res. 2026;262:110729.
- Owens DR, et al. IDF diabetes Atlas: A worldwide review of studies utilizing retinal photography to screen for diabetic retinopathy from 2017 to 2024 inclusive. Diabetes Res Clin Pract. 2025;226:112346.
- Zhu J, Huang J, Sun Y, Xu W, Qian H. Emerging role of extracellular vesicles in diabetic retinopathy. Theranostics. 2024;14(4):1631–1646.
- Xie L, Lin W. The role of gut microbiota dysbiosis in the inflammatory pathogenesis of diabetic retinopathy. Front Immunol. 2025;16:1604315.
- Niu J, Liu Y, Peng H, Chen J, Chen L. Early-stage diabetic retinopathy: gut-metabolic triggers, immune-neurodegeneration, and interventions. Graefes Arch Clin Exp Ophthalmol. 2025;263(10):2723–2736.
- Rowan S, et al. Involvement of a gut-retina axis in protection against dietary glycemia-induced age-related macular degeneration. Proc Natl Acad Sci U S A. 2017;114(22):E4472–E4481.
- Rzeczycki P, Pęciak O, Plust M, Droździk M. Gut Microbiota in the Regulation of Intestinal Drug Transporters: Molecular Mechanisms and Pharmacokinetic Implications. Int J Mol Sci. 2025;26(24):11897.
- Yang H, et al. Mediating role of aging and obesity in the relationship between dietary index for gut microbiota and metabolic syndrome and its potential regulatory mechanisms. Eur J Med Res. 2025;31(1):137.
- Zahavi EE, et al. Repeat-element RNAs integrate a neuronal growth circuit. Cell. 2025;188(16):4350–4365.e22.
- Dander E, et al. The chemerin/CMKLR1 axis regulates intestinal graft-versus-host disease. JCI Insight. 2023;8(5):e154440.
- Zhang J, et al. Therapeutic targets in the Wnt signaling pathway: Treating cancer with specificity. Biochem Pharmacol. 2025;236:116848.
- Liu M, Lim ST, Song W, Coffman TM, Wang X. Beyond lipids: fenofibrate in diabetic retinopathy and nephropathy. Trends Pharmacol Sci. 2026;47(3):325–341.
- Wu Y, et al. The active ingredient β-sitosterol in the anti-inflammatory agents alleviates perianal inflammation in rats by inhibiting the expression of Srebf2, activating the PPAR signaling pathway, and altering the composition of gut microbiota. Int Immunopharmacol. 2025;152:114470.
- Lin T, Chen C, Zhao LC, Zhu HY, Li W. The beneficial effects of Traditional Chinese Medicine on diabetic retinopathy: mechanisms, therapeutics, and prospects. Acupunct Herb Med 2026;6(2):188–204.
- Huo J, et al. Evaluation of individualized treatment of nonproliferative diabetic retinopathy: a multicenter, randomized, parallel-controlled study. J Tradit Chin Med. 2022;42(1):90–95.
- Huang Y, et al. Pharmacological mechanism and clinical study of Qiming granules in treating diabetic retinopathy based on network pharmacology and literature review. J Ethnopharmacol. 2023;302(Pt A):115861.
- Salma B, et al. Ameliorative Efficacy of the Cassia auriculata Root Against High-Fat-Diet + STZ-Induced Type-2 Diabetes in C57BL/6 Mice. ACS Omega. 2020;6(1):492–504.
- Srinivasan K, Viswanad B, Asrat L, Kaul CL, Ramarao P. Combination of high-fat diet-fed and low-dose streptozotocin-treated rat: a model for type 2 diabetes and pharmacological screening. Pharmacol Res. 2005;52(4):313–320.
- Liu Y, Deng J, Fan D. Ginsenoside Rk3 ameliorates high-fat-diet/streptozocin-induced type 2 diabetes mellitus in mice via the AMPK/Akt signaling pathway. Food Funct. 2019;10(5):2538–2551.
- Hu RY, et al. AFG Ameliorates Diabetic Retinopathy through AMPK-Dependent Autolysosomal Pathway: From Network Pharmacology to In Vivo and In Vitro Validation. J Agric Food Chem. 2026;74(2):2124–2139.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659–661.
- Zou Q, et al. Oxidative stress in diabetic retinopathy. Clin Chim Acta. 2026;584:120871.
- Clements JN, Mesawich J, Twisdale C. Current and Emerging Pharmacologic Therapies for Diabetic Retinopathy. Pharmacotherapy. 2026;46(3):e70119.
- Rezvani Z, Khani F, Afarid M, Asadian F, Takhshid MA. Clinical values of systemic inflammatory indices in diabetic retinopathy. Clin Exp Optom. 2026;109(3):371–385.
- Zhu Z, et al. Targeting the CMKLR1-Mediated Signaling Rebalances Immunometabolism State in Middle-Age Testicular Macrophages. Adv Sci (Weinh). 2026;13(14):e15166.
- Lin Y, et al. Epithelial chemerin-CMKLR1 signaling restricts microbiota-driven colonic neutrophilia and tumorigenesis by up-regulating lactoperoxidase. Proc Natl Acad Sci U S A. 2022;119(29):e2205574119.
- Puthanmadhom Narayanan S, et al. Epigenetic Alterations Are Associated With Gastric Emptying Disturbances in Diabetes Mellitus. Clin Transl Gastroenterol. 2020;11(3):e00136.
- Wang L, et al. Chemerin/CMKLR1 Axis Promotes the Progression of Proliferative Diabetic Retinopathy. Int J Endocrinol. 2021;2021:4468625.
- Zheng C, et al. α-NETA down-regulates CMKLR1 mRNA expression in ileum and prevents body weight gains collaborating with ERK inhibitor PD98059 in turn to alleviate hepatic steatosis in HFD-induced obese mice but no impact on ileal mucosal integrity and steatohepatitis progression. BMC Endocr Disord. 2023;23(1):9.
- Dranse HJ, et al. The impact of chemerin or chemokine-like receptor 1 loss on the mouse gut microbiome. PeerJ. 2018;6:e5494.
- Flores-Hernández E, et al. Canonical and non-canonical Wnt signaling are simultaneously activated by Wnts in colon cancer cells. Cell Signal. 2020;72:109636.
- Qi Y, et al. Heat-inactivated Bifidobacterium adolescentis ameliorates colon senescence through Paneth-like-cell-mediated stem cell activation. Nat Commun. 2023;14(1):6121.
- Ou W, et al. Cooperation of Wnt/β-catenin and Dll1-mediated Notch pathway in Lgr5-positive intestinal stem cells regulates the mucosal injury and repair in DSS-induced colitis mice model. Gastroenterol Rep (Oxf). 2024;12:goae090.
- Dong Y, et al. Berberine ameliorates DSS-induced intestinal mucosal barrier dysfunction through microbiota-dependence and Wnt/β-catenin pathway. Int J Biol Sci. 2022;18(4):1381–1397.
- Escandon P, et al. The role of peroxisome proliferator-activated receptors in healthy and diseased eyes. Exp Eye Res. 2021;208:108617.
- Blot G, et al. Perilipin 2-positive mononuclear phagocytes accumulate in the diabetic retina and promote PPARγ-dependent vasodegeneration. J Clin Invest. 2023;133(19):e161348.
- Zhou W, et al. TREM2-dependent activation of microglial cell protects photoreceptor cell during retinal degeneration via PPARγ and CD36. Cell Death Dis. 2024;15(8):623.
- Bala Kumar S, et al. Gut microbial metabolites targeting JUN in renal cell carcinoma via IL-17 signaling pathway: network pharmacology approach. Mol Divers. 2026;30(1):613–632.
- Wang L, et al. Gut microbial bile acid metabolite skews macrophage polarization and contributes to high-fat diet-induced colonic inflammation. Gut Microbes. 2020;12(1):1–20.
- Hagan T, et al. Antibiotics-Driven Gut Microbiome Perturbation Alters Immunity to Vaccines in Humans. Cell. 2019;178(6):1313–1328.e13.
- Meng Y, et al. Jinlida ameliorates diabetic kidney disease via gut microbiota-dependent production of pyridoxamine targeting renal AGEs/RAGE and TGF-β pathways. Phytomedicine. 2026;150:157744.
- Zhou H, Zhang L, Ding C, Zhou Y, Li Y. Upregulation of HMOX1 associated with M2 macrophage infiltration and ferroptosis in proliferative diabetic retinopathy. Int Immunopharmacol. 2024;134:112231.
- Mohammad HMF, et al. Neuroprotective effect of levetiracetam in mouse diabetic retinopathy: Effect on glucose transporter-1 and GAP43 expression. Life Sci. 2019;232:116588.
- Peng H, et al. Autophagy and senescence of rat retinal precursor cells under high glucose. Front Endocrinol (Lausanne). 2023;13:1047642.
- Ding Y, Chen L, Xu J, Feng Y, Liu Q. APAF1 Silencing Ameliorates Diabetic Retinopathy by Suppressing Inflammation, Oxidative Stress, and Caspase-3/GSDME-Dependent Pyroptosis. Diabetes Metab Syndr Obes. 2024;17:1635–1649.
- Yang T, et al. Clinical study on the modulating effects of Jiaotaiwan on the modulating effects of microbiota–SCFAs–neurotransmitter/immune axis in patients with depression. Acupunct Herb Med 2025;5(4):456–468.
- Luo XX, et al. Effect of qiming granule on retinal blood circulation of diabetic retinopathy: a multicenter clinical trial. Chin J Integr Med. 2009;15(5):384–388.
- Hu Z, et al. Add-on effect of Qiming granule, a Chinese patent medicine, in treating diabetic macular edema: A systematic review and meta-analysis. Phytother Res. 2021;35(2):587–602.
- Yang M, et al. The Efficacy and Safety of Qiming Granule for Dry Eye Disease: A Systematic Review and Meta-Analysis. Front Pharmacol. 2020;11:580.
- Ma XF, et al. Efficacy and Safety of Qiming Granule for Nerve Injury Associated with Non-proliferative Diabetic Retinopathy: A Multicenter, Randomized, Non-inferiority, Active-Controlled Clinical Trial. Chin J Integr Med. 2026;32(3):195–203.
- Zhou Q, et al. Qiming granules regulate Müller cell pyroptosis and the P2X7R/NLRP3 immune inflammatory pathway in diabetic retinopathy. Chin Med. 2026;21(1):89.
- Zhou L, Qin T, Lv Y, Wu Z. Qiming Granules Ameliorate Diabetic Retinopathy by Regulating the PI3K/Akt Signaling Pathway. J Ocul Pharmacol Ther. 2026;42(3):202–212.
- Li HD, Li MX, Zhang WH, Zhang SW, Gong YB. Effectiveness and safety of traditional Chinese medicine for diabetic retinopathy: A systematic review and network meta-analysis of randomized clinical trials. World J Diabetes. 2023;14(9):1422–1449.
- Chen F, et al. Isorhamnetin promotes functional recovery in rats with spinal cord injury by abating oxidative stress and modulating M2 macrophages/microglia polarization. Eur J Pharmacol. 2021;895:173878.
- Naudhani M, Thakur K, Ni ZJ, Zhang JG, Wei ZJ. Formononetin reshapes the gut microbiota, prevents progression of obesity and improves host metabolism. Food Funct. 2021;12(24):12303–12324.
- Qu Y, et al. Kaempferol Alleviates Murine Experimental Colitis by Restoring Gut Microbiota and Inhibiting the LPS-TLR4-NF-κB Axis. Front Immunol. 2021;12:679897.
- Saikia L, et al. Therapeutic Potential of Quercetin in Diabetic Neuropathy and Retinopathy: Exploring Molecular Mechanisms. Curr Top Med Chem. 2024;24(27):2351–2361.
- Yao H, et al. Kaempferol Protects Blood Vessels From Damage Induced by Oxidative Stress and Inflammation in Association With the Nrf2/HO-1 Signaling Pathway. Front Pharmacol. 2020;11:1118.
- Zhang HX, Li YY, Liu ZJ, Wang JF. Quercetin effectively improves LPS-induced intestinal inflammation, pyroptosis, and disruption of the barrier function through the TLR4/NF-κB/NLRP3 signaling pathway in vivo and in vitro. Food Nutr Res. 2022;66:10.