Plazma LINC00707 ekspresyonu spinal kord yaralanmasında artmıştır ve miR-145-5p/TRAF6 sinyal ekseni aracılığıyla mikroglia kaynaklı inflamasyonu ve oksidatif stresi teşvik eder. LINC00707'nin susturulması bu patolojik yanıtları hafifleterek, terapötik bir hedef olarak potansiyelini ortaya koymaktadır.
Araştırma makalesi
Omurilik Yaralanmasında LINC00707 Susturulması, miR-145-5p/TRAF6 Ekseni aracılığıyla LPS-stimüle edilmiş BV2 Mikroglialarında İnflamasyonu ve Oksidatif Stresi Azaltır
111 görüntülenme
⸱
11 Eylül 2026
* These authors contributed equally
Bu makalede
Özet
Özet
Omurilik yaralanması (SCI), yaşam boyu süren engelliliğe neden olur, refah düzeyini ciddi şekilde düşürür ve önemli bir sosyoekonomik yük getirir. Bu çalışma, miR-145-5p/TRAF6 sinyal ekseninin düzenlemesi yoluyla LINC00707'nin SCI'daki rolunu araştırmıştır. 30 sağlıklı bireyden ve 75 SCI hastasından alınan plazma örnekleri, LINC00707, miR-145-5p ve TRAF6 ekspresyonu açısından RT-qPCR kullanılarak analiz edilmiştir. SCI hastalarında plazma LINC00707 seviyeleri ile pro-inflamatuar faktörler arasındaki ilişkiler değerlendirilmiştir. BV2 mikroglial hücreleri 100 ng/mL LPS'ye maruz bırakılmış ve inflamasyon ile oksidatif stresle ilişkili faktörler ölçülmüştür. Moleküler etkileşimler, çift lüsiferaz raporlayıcı testi kullanılarak değerlendirilmiştir. LINC00707 ekspresyonu ile ilişkili faktörleri belirlemek için lojistik regresyon analizi kullanılmıştır. SCI hastalarında plazma LINC00707 ve TRAF6 seviyeleri artmışken, miR-145-5p seviyeleri azalmıştır. Plazma LINC00707 seviyeleri, plazma inflamatuar faktör seviyeleri ile pozitif korelasyon göstermiştir. LINC00707, miR-145-5p için moleküler bir sünger görevi görmüş ve TRAF6'nın miR-145-5p'nin hedef geni olduğu saptanmıştır. LINC00707'nin inhibisyonu, BV2 hücrelerinde inflamatuar faktörleri, pro-oksidatif stres maddelerini ve TRAF6 mRNA seviyelerini düşürmüştür. miR-145-5p inhibisyonu ise ters etkiler yaratmıştır. Bu bulgular, yüksek LINC00707 ekspresyonunun SCI şiddeti ile ilişkili olduğunu ve LINC00707 nakavtının miR-145-5p/TRAF6 sinyal eksenini düzenleyerek mikroglia aracılı inflamasyonu ve oksidatif stresi hafifletebileceğini göstermektedir.
Giriş
Omurilik yaralanması (SCI), merkezi sinir sisteminin kritik bir bileşeni olan omuriliğe zarar veren travmatik bir durumdur. SCI, omurilik ile beyin arasındaki nöral iletim yollarını doğrudan bozarak motor, duyusal ve otonom fonksiyonlarda ciddi bozulmalara neden olur1,2. Epidemiyolojik çalışmalar, yıllık insidansın 100.000 kişi başına yaklaşık 5 vaka olduğunu ve hastalığa bağlı mortalitenin %16,7'ye kadar ulaştığını bildirmiştir3,4. Kanada'da yapılan bir araştırma, her bir SCI hastası için yaşam boyu rehabilitasyon maliyetinin 336.000 ABD doları kadar yüksek olabileceğini tahmin etmiştir5. Yüksek insidans, mortalite ve tanı, tedavi ile rehabilitasyonla ilişkili önemli maliyetler, SCI'yı gelişmiş terapötik stratejiler gerektiren büyük bir klinik zorluk haline getirmektedir.
Omurilik yaralanmasının (SCI) patolojik ilerlemesi iki aşamadan oluşur: primer ve sekonder yaralanma. Primer yaralanma, omurilik dokusunun travmatik mekanik sıkışması veya parçalanması sonucunda meydana gelirken; sekonder yaralanma, inflamasyon ve oksidatif stres dahil olmak üzere patolojik süreçler tarafından yönetilir6,7. Fizyolojik koşullar altında, mikroglia aracılı nöroinflamasyon, merkezi sinir sistemi homeostazına katkıda bulunur8,9,10. Ancak SCI sonrasında mikroglialar aşırı derecede aktive olur ve büyük miktarlarda proinflamatuar mediyatörler salgılar11,12. Bu mediyatörler, reaktif oksijen türlerinin (ROS) aşırı üretimine yol açarak nöronal hasara ve ölüme neden olur ve sekonder omurilik yaralanmasını kötüleştirir13,14. Bu nedenle, aşırı mikroglial aktivasyonun baskılanması ve inflamatuar kaskadın kesilmesi, nörolojik iyileşmeyi teşvik etmek ve SCI sonrası sonuçları iyileştirmek için gelecek vaat eden terapötik stratejileri temsil etmektedir.
Uzun kodlamayan RNA'lar (lncRNA'lar), protein kodlama potansiyeli olmayan ve 200 nükleotitten daha uzun olan bir kodlamayan RNA sınıfıdır.15Başlangıçta transkripsiyonel olarak kabul edilen "gürültü," lncRNA'ların artık çeşitli fizyolojik ve patolojik süreçlerin önemli düzenleyicileri olduğu kabul edilmektedir16Güncel çalışmalar, lncRNA'ların nöral yaralanmalarda kritik roller oynadığını göstermiştir. Uzun intergenik protein kodlamayan RNA 707 (LINC00707), sinir sistemi bozukluklarının önemli bir düzenleyicisi olarak ortaya çıkmıştır. Önceki çalışmalar, LINC00707'nin mikroglia aracılı inflamasyonu artırarak travmatik beyin hasarını ağırlaştırdığını bildirmiştir.17Ayrıca, Zhu ve ark. LINC00707'nin susturulmasının, PC12 hücrelerinde lipopolisakkarit (LPS) ile indüklenen inflamasyonu ve apoptozu önemli ölçüde azalttığını göstermiştir18Bu bulgular, LINC00707'nin SCI'daki rolünün araştırılması için öncül bir teorik temel sağlamaktadır. Ancak, LINC00707'nin SCI sırasında mikroglia aracılı inflamasyonu düzenleyip düzenlemediği henüz aydınlatılmamıştır.
LncRNA'lar, mikroRNA'ları (miRNA'lar) hapsederek ve aşağı akış hedef gen ekspresyonunu düzenleyerek, kompetitif endojen RNA (ceRNA) mekanizması aracılığıyla moleküler süngerler gibi hareket ederler19. Bu düzenleyici örüntü, çeşitli hastalıkların patogenezinde yaygın olarak rol oynamaktadır. Özellikle, miR-145-5p'nin SCI dokularında20 ve LPSle tetiklenen yaralanmalar sırasında21 anlamlı derecede azaldığı görülmüş olup, aşırı ekspresyonunun mikrogliyal inflamatuar ve oksidatif stres yanıtlarını etkili bir şekilde hafiflettiği saptanmıştır22. Tümör nekroz faktörü reseptörü ilişkili faktör 6 (TRAF6) da SCI patolojisinde merkezi bir rol oynamaktadır23,24,25. Bununla birlikte, LINC00707, miR-145-5p ve TRAF6'nın SCI'da koordineli düzenleyici fonksiyonlar yürütüp yürütmediği henüz aydınlatılmamıştır.
Mevcut çalışmada, LPS ile stimüle edilmiş mikroglial hücrelerde LINC00707 ekspresyonunun anlamlı şekilde arttığı görülmüştür. Bu nedenle, LINC00707'nin mikroglialarda pro-inflamatuar bir regülatör olarak hareket edebileceği ve susturulmasının nöroinflamatuar yanıtı hafifleterek SCI'nın patolojik progresyonunu iyileştirebileceği hipotezini kurduk. Bu çalışma, LINC00707'nin mikroglial inflamatuar yanıtları regüle edip etmediğini ve SCI patogenezine katkıda bulunup bulunmadığını araştırmıştır.
Protokol
Bu çalışma, Zhangjiakou First Hospital Etik Kurulu tarafından onaylanmıştır (onay No. 2024-KY-18). Tüm katılımcılar, çalışma amaçları ve potansiyel riskler hakkında bilgilendirilmiş ve kayıt öncesinde yazılı onam formunu imzalamıştır. Venöz kan örnekleri, sağlıklı kontrol grubundan rutin fiziksel muayeneler sırasında, SCI'lı hastalardan ise hastaneye yatışın hemen ardından toplanmıştır. Laboratuvar ölçümleri hastanenin klinik laboratuvarı tarafından gerçekleştirilmiştir. Bu protokolde kullanılan araştırma araçları Materyaller Tablosu'nda listelenmiştir.
1. Denekler
Ocak 2023 ile Ocak 2025 tarihleri arasında Zhangjiakou Birinci Hastanesi'nden toplam 75 SCI hastası dahil edilmiştir. Dahil edilme kriterleri, bilgisayarlı tomografi (CT) veya manyetik rezonans görüntüleme (MRI) ile doğrulanmış SCI ve yaralanma ile hastaneye yatış süresinin ≤ 12 h olmasıdır. Hariç tutma kriterleri ise son 6 ay içinde omurilik veya beyin travması veya cerrahi öyküsü; miyokard enfarktüsü veya aritmi dahil olmak üzere şiddetli kardiyovasküler hastalık; gebelik veya laktasyon; malign tümörler, bozulmuş karaciğer veya böbrek fonksiyonu, şiddetli serebrovasküler hastalık veya enfeksiyöz hastalıklardır.
Amerikan Omurga Yaralanması Derneği (ASIA) nörolojik sınıflandırma standartlarına göre26, SCI hastası olan 75 kişi; normal nörolojik fonksiyon (n = 21), inkompleks SCI (n = 36) ve komple SCI (n = 18) gruplarına ayrılmıştır. Yaralanma bölgelerinin dağılımı şu şekildedir: servikal, %36,0; torakal, %30,7 ve lomber, %33,3. Kontrol grubu olarak görev yapmak üzere, çalışma popülasyonu ile eşleştirilmiş 30 sağlıklı birey rastgele seçilmiştir. Tüm katılımcılar için başlangıç klinik bilgileri toplanmıştır. Sağlıklı bireyler için dahil edilme kriterleri; omurilik veya beyin travması, cerrahi müdahale veya nörolojik bozukluk öyküsünün olmaması; kronik inflamatuar hastalıklar, otoimmün bozukluklar veya malignite öyküsünün olmaması; ağır kardiyovasküler, hepatik veya renal hastalığın olmaması; önceki 4 hafta içinde akut veya kronik enfeksiyonun bulunmaması; hamilelik veya laktasyon durumunun olmaması; yaş ve cinsiyet açısından SCI grubu ile eşleşmiş olmasıdır.
Günlük aktivitelerdeki fonksiyonel bağımsızlığı değerlendirmek için Fonksiyonel Bağımsızlık Ölçümü (FIM) kullanılmıştır. Maksimum FIM puanı 126'dır. Duyusal ve motor fonksiyonları değerlendirmek için dokunma duyusu, akmeztezi ve motor puanlar kullanılmıştır. Maksimum dokunma duyusu ve akmeztezi puanları 112, maksimum motor puan ise 100'dür. Daha düşük puanlar, daha şiddetli nörolojik bozukluğa işaret eder.
2. Hücre kültürü, model oluşturma ve transfeksiyon
Ölümsüzleştirilmiş fare mikroglial BV2 hücreleri, Şanghay Biyoteknoloji Enstitüsü Hücre Kaynak Merkezi'nden temin edildi. Hücreler; %10 fetal sığır serumu (FBS), penisilin (100 U/mL) ve streptomisin (100 U/mL) ile desteklenmiş yüksek glukozlu Dulbecco's Modified Eagle Medium (DMEM) içerisinde kültüre edildi. Hücreler, %5 CO₂ içeren nemlendirilmiş bir inkübatörde 37 °C'de tutuldu.
Model oluşturma için, BV2 hücreleri 24 saat boyunca 0, 10, 20, 50, 100, 150 veya 200 ng/mL lipopolisakkarit (LPS) ile stimüle edildi. Optimal LPS konsantrasyonu, deneysel sonuçlara göre belirlendi.
Transfeksiyon için BV2 hücreleri 6 kuyucuklu plakalara ekilmiş ve uygun konfluens düzeyine ulaştıklarında transfekte edilmiştir. Üretici talimatlarına uygun olarak, kuyucuk başına 1,5 µL transfeksiyon reaktifi kullanılmıştır. 6 saat sonra kültür ortamı taze ortamla değiştirilmiş ve hücreler 24 saat daha kültüre edilmiştir. LINC00707 nakavt konstrüktü, ilgili negatif kontrol, miR-145-5p oligonükleotiti ve ilgili kontrol oligonükleotitinin her biri, kuyucuk başına 50 nM konsantrasyonda kullanılmıştır. Tüm transfeksiyon deneyleri, her bağımsız deneyde 3 paralel replika olacak şekilde en az 5 kez bağımsız olarak tekrarlanmıştır. Veriler, en az 5 bağımsız deneyin sonuçları kullanılarak istatistiksel olarak analiz edilmiştir.
3. ELISA
Transfekte edilmiş ve LPS ile stimüle edilmiş BV2 hücrelerinin kültür süpernatantları 12,000 × g'de 10 dk santrifüjle toplandı ve interleukin-1β (IL-1β), IL-6 ve tümör nekroz faktör-α (TNF-α) seviyeleri ilgili ELISA kitleri kullanılarak ölçüldü. Kısaca analiz, üretici talimatlarına uygun olarak biyotinize bir antikor, bir HRP-streptavidin konjugatı ve bir TMB substratı ile sırayla inkübe edilerek gerçekleştirildi. Absorbans, bir mikroplaka okuyucu kullanılarak 450 nm'de kaydedildi. Sitokin seviyeleri standart eğrilerden belirlendi. Her örnek üç paralel ölçümde analiz edildi ve 6 bağımsız deney gerçekleştirildi.
4. ROS ölçümü
LPS ile stimüle edilmiş BV2 hücrelerindeki hücre içi ROS seviyeleri, bir reaktif oksijen türleri analiz kiti kullanılarak ölçülmüştür. Kısaca, hücreler 37 °C'de 20 dk boyunca 10 µmol/L DCFH-DA ile inkübe edilmiştir. İnkübasyon sonrası süpernatant uzaklaştırılmış ve fazla hücre dışı probu temizlemek için hücreler fosfat tamponlu salin (PBS) ile 3 kez yıkanmıştır. Floresans yoğunluğu, bir mikroplaka okuyucu kullanılarak sırasıyla 488 nm eksitasyon ve 525 nm emisyon dalga boylarında ölçülmüştür. Bağıl ROS seviyeleri, floresans yoğunluğuna göre hesaplanmıştır. Tüm örnekler üç paralel olarak analiz edilmiş ve tüm deney en az 5 kez bağımsız olarak tekrarlanmıştır.
5. Malondialdehit, süperoksit dismutaz ve glutatyon tayini
İşlem görmüş BV2 hücreleri toplandı ve hücre homojenatları hazırlandı. Süpernatantı elde etmek için örnekler 4 °C'de 10 dk boyunca 12,000 × g hızında santrifüj edildi. Hücre süpernatantlarındaki düzeylerini belirlemek için malondialdehit (MDA), süperoksit dismutaz (SOD) ve glutatyon (GSH) için ticari tespit kitleri, üreticinin talimatlarına uygun olarak kullanıldı. Tüm örnekler üç paralel olarak analiz edildi ve tüm deney en az 5 kez bağımsız olarak tekrarlandı.
6. Çift lüsiferaz raporlayıcı testi
Tahmin edilen miR-145-5p bağlanma bölgelerini içeren LINC00707 ve TRAF6 3' çevrilmeyen bölge (3' UTR) fragmanları, karşılık gelen mutant dizilerle birlikte; vahşi tip (WT-LINC00707 ve WT-TRAF6) ve mutant (MUT-LINC00707 ve MUT-TRAF6) raporlayıcı konstrüktlar oluşturmak amacıyla pmirGLO lüsiferaz raporlayıcı vektörüne klonlandı. BV2 hücreleri, raporlayıcı konstrüktlar ve miR-145-5p oligonükleotidleri ile birlikte ko-transfekte edildi ve 24 sa boyunca kültüre edildi. Ardından hücreler toplandı ve bir mikroplaka okuyucu kullanılarak firefly ve Renilla lüsiferaz aktiviteleri ölçüldü.
7. RT-qPCR
Toplam RNA, bir RNA ekstraksiyon reaktifi kullanılarak ekstrakte edildi. RNA kalitesi, 1,8 ile 2,0 arasındaki değerler kabul edilebilir sayılarak OD₂₆₀/OD₂₈₀ oranıyla değerlendirildi. Yaklaşık 1 µg toplam RNA, bir ters transkripsiyon kiti kullanılarak cDNA'ya ters transkripte edildi. Gen ekspresyonu, SYBR Green PCR master mix kullanılarak RT-qPCR ile kantitatif olarak belirlendi. Ters transkripsiyon 42 °C'de 15 dk boyunca gerçekleştirildi ve ardından ters transkriptaz inaktivasyonu 95 °C'de 3 dk boyunca yapıldı. Sentezlenen cDNA, analiz edilene kadar −20 °C'de saklandı. Kantitatif gerçek zamanlı PCR, 95 °C'de 1 dk ön-denatürasyonu takiben, 95 °C'de 5 sn denatürasyon ve 60 °C'de 15 sn tavlama ve uzama şeklinde 40 döngü olarak gerçekleştirildi. Floresan sinyalleri, her tavlama ve uzama adımının sonunda toplandı. Erime eğrisi analizi 95 °C'de 15 sn, ardından 60 °C'de 1 dk boyunca yapıldı. Göreceli ekspresyon seviyeleri 2⁻ΔΔCt yöntemi kullanılarak hesaplandı. Gen ekspresyon normalizasyonu için iç referans olarak GAPDH veya 5S kullanıldı. Primer dizileri şu şekildeydi: LINC00707, ileri 5'-CCAACAGGGTATCAGAATTCTC-3' ve geri 5'-TGCTGACAATAGCCATTAGG-3'; miR-145-5p, ileri 5'-GCCGAGGTCCAGTTTTCCCA-3' ve geri 5'-CTCAACTGGTGTCGTGGA-3'; TRAF6, ileri 5'-ATTACAACTGAGGTGCTTCT-3' ve geri 5'-GCATCTGGTTCTGTTATAGGA-3'; GAPDH, ileri 5'-ATCCCATCACCATCTTCCAGG-3' ve geri 5'-CGCCCCACTTGATTTTGG-3'; ve 5S, ileri 5'-TCGTCTGATCTCGGAAGCTAA-3' ve geri 5'-AAGCCTACAGCACCCGGTAT-3'.
8. İstatistiksel analiz
İstatistiksel analizler, istatistiksel yazılımlar kullanılarak gerçekleştirilmiştir. Veri dağılımının normalliği, P > 0,05 değerinin normal dağılımı belirttiği Shapiro-Wilk testi ile değerlendirilmiştir. Normal dağılan veriler ortalama ± SD şeklinde, normal dağılmayan veriler ise medyan (P25, P75) olarak sunulmuştur. Normal dağılım gösteren sürekli değişkenler için 2 grup arasındaki karşılaştırmalar Student's t-testi ile, çoklu gruplar arasındaki karşılaştırmalar ise tek yönlü ANOVA ve ardından Tukey post hoc testi ile yapılmıştır. Normal dağılmayan veriler için 2 grup karşılaştırmalarında Mann-Whitney U testi, çoklu grup karşılaştırmalarında ise Kruskal-Wallis testi kullanılmıştır. Gruplar arasındaki kategorik değişkenlerin analizi için ki-kare testi kullanılmıştır. LINC00707 ekspresyonu ile ilişkili klinik faktörleri değerlendirmek için tek değişkenli ve çok değişkenli lojistik regresyon analizleri kullanılmıştır. Sürekli değişkenler, kohort medyanına göre ikiye ayrılmıştır (yüksek değer grubu = 1; düşük değer grubu = 0). Tek değişkenli lojistik regresyon analizinde P < 0,05 olan değişkenler, çok değişkenli lojistik regresyon analizine dahil edilmiştir. Sonuçlar, OR > 1 pozitif ilişkiyi ve OR < 1 negatif ilişkiyi belirttiği şekilde, %95 güven aralıkları (CI) ile birlikte odds oranları (OR) olarak sunulmuştur. Tüm hücre fenotip deneyleri, biyolojik replika başına 3 teknik replika olmak üzere en az 4 bağımsız biyolojik replika içermiştir. P < 0,05 değeri istatistiksel olarak anlamlı kabul edilmiştir.
Sonuçlar
SCI hastalarında plazma LINC00707 seviyeleri yükselmişti
30 sağlıklı denek ve 75 SCI hastasının başlangıç klinik özellikleri analiz edildi. Sağlıklı deneklerle karşılaştırıldığında, SCI hastalarında dokunma duyusu, akmestezisi, motor ve Fonksiyonel Bağımsızlık Ölçümü (FIM) skorları belirgin şekilde daha düşük olup, bu durum bozulmuş duyusal ve motor fonksiyonlara işaret etmektedir. Ayrıca, pro-inflamatuar sitokinlerin serum seviyeleri, SCI hastalarında sağlıklı kontrollerden anlamlı derecede daha yüksek bulunmuştur (Tablo 1, P < 0.001), bu da artmış bir inflamatuar yanıtı önermektedir.
| Öğeler | HS | SCI | P-değeri |
| (n=30) | (n=75) | ||
| Yaş (yıl) | 45.83±10.06 | 46.17±9.92 | 0.786 |
| VKİ (kg/m2) | 22.82±1.57 | 23.94±1.29 | 0.69 |
| Cinsiyet (erkek, n) | 18 | 41 | 0.619 |
| Sigara kullanımı (n) | 11 | 28 | 0.949 |
| Alkol kullanımı (n) | 14 | 33 | 0.804 |
| SCI ASIA Sınıflandırması (n) | / | ||
| Komple SCI | / | 18 | |
| İnkomplet SCI | / | 36 | |
| Normal nöral fonksiyon | / | 21 | |
| SCI yaralanma seviyesi (n, %) | / | ||
| Servikal vertebra | / | 27 (36.0%) | |
| Torakal vertebra | / | 23 (30.7%) | |
| Lumbal vertebra | / | 25 (33.3%) | |
| Taktil duyusu skoru | / | 53.42±22.12 | |
| Acmestezya skoru | / | 53.39±24.68 | |
| Egzersiz skoru | / | 49.07±18.74 | |
| Fonksiyonel Bağımsızlık Ölçümü skoru | / | 71.33±19.41 | |
| IL-1β (pg/mL) | 1.47±0.52 | 52.21±11.32 | <0.001 |
| IL-6 (pg/mL) | 2.14±0.97 | 88.47±23.52 | <0.001 |
| TNF-α (pg/mL) | 2.84±1.13 | 61.09±18.24 | <0.001 |
| CRP (mg/L) | 1.42±0.63 | 62.67±21.85 | <0.001 |
| Kısaltmalar: HS, sağlıklı denek; SCI, Omurilik Yaralanması; VKİ, Vücut kitle indeksi; ASIA, Amerikan Omurilik Yaralanmaları Birliği; FIM, Fonksiyonel bağımsızlık ölçümü; IL, İnterlökin; TNF, Tümör nekroz faktörü; CRP, C-reaktif protein. | |||
Tablo 1: Sağlıklı denekler ile omurilik yaralanması olan hastaların bazal klinik özelliklerinin karşılaştırılması.Bu tablo; sağlıklı denekler ile omurilik yaralanması olan hastalar arasındaki demografik özellikleri, nörolojik fonksiyon skorlarını, yaralanma ile ilgili değişkenleri ve inflamatuar belirteç seviyelerini karşılaştırmaktadır. Kısaltmalar: HS, sağlıklı denekler; SCI, omurilik yaralanması; ASIA, Amerikan Omurilik Yaralanmaları Derneği; FIM, Fonksiyonel Bağımsızlık Ölçümü; IL, interlökin; TNF, tümör nekroz faktörü; CRP, C-reaktif protein.
Plazma LINC00707 ekspresyonu RT-qPCR kullanılarak nicelendirildi. Sağlıklı deneklerle karşılaştırıldığında, SCI hastalarında plazma LINC00707 ekspresyonu anlamlı düzeyde artmıştı (Şekil 1A, P < 0.001). Alıcı işletim karakteristiği (ROC) eğrisi analizi, LINC00707 ekspresyonunun SCI hastalarını sağlıklı deneklerden ayırt etmede bazı ayırt edici değerlere sahip olabileceğine dair ön kanıtlar sağladı (Şekil 1B). Ayrıca, plazma LINC00707 ekspresyonu, SCI'nın klinik şiddeti arttıkça artış gösterdi (Şekil 1C, P < 0.001). Korelasyon analizi, plazma LINC00707 ekspresyonunun IL-1β (r = 0.635, P < 0.001), IL-6 (r = 0.612, P < 0.001), TNF-α (r = 0.675, P < 0.001) ve C-reaktif protein (CRP; r = 0.611, P < 0.001) düzeyleri ile pozitif ilişkili olduğunu gösterdi (Şekil 1D–G). Bu bulgular, yüksek LINC00707 ekspresyonunun SCI hastalarındaki inflamatuar yanıtlarla ilişkili olduğunu düşündürmektedir.
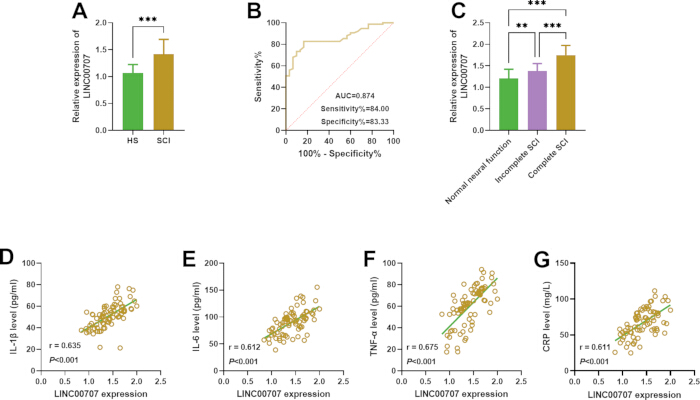
Şekil 1: Plazma LINC00707 ekspresyonu ve plazma inflamatuar faktörleri ile korelasyonları. (A) Plazma LINC00707 ekspresyonu, omurilik yaralanması (SCI) olan hastalarda sağlıklı deneklere göre daha yüksekti. İstatistiksel analiz bağımsız örneklem t-testi kullanılarak gerçekleştirildi. (B) Alıcı işletim karakteristik (ROC) eğrisi analizi, LINC00707 ekspresyonunun SCI hastalarını sağlıklı deneklerden ayırt etmek için yararlı olabileceğine dair başlangıç düzeyinde bir gösterge sağladı. (C) Plazma LINC00707 ekspresyonu, Amerikan Omurilik Yaralanmaları Derneği (ASIA) sınıflandırmasına göre artan SCI şiddetiyle birlikte arttı. İstatistiksel analiz tek yönlü ANOVA ve ardından Tukey HSD post hoc testi kullanılarak gerçekleştirildi. (D–G) Plazma LINC00707 ekspresyonu, inflamatuar faktör seviyeleriyle pozitif korelasyon gösterdi. İstatistiksel analiz Pearson korelasyon analizi kullanılarak gerçekleştirildi. *P < 0.01 ve **P < 0.001. Sağlıklı denekler, n = 30; SCI hastaları, n = 75. Veriler ortalama ± SD olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
LINC00707 ekspresyonu ile ilişkili faktörler, tek değişkenli ve çok değişkenli lojistik regresyon kullanılarak analiz edildi
LINC00707 ekspresyonu ile ilişkili faktörleri belirlemek için tek değişkenli ve çok değişkenli lojistik regresyon analizleri gerçekleştirildi. Tek değişkenli analiz, SCI'nın ASIA sınıflandırmasının (OR = 3.912, 95% CI: 1.792–8.537, P < 0.001), FIM skorunun (OR = 0.281, 95% CI: 0.108–0.729, P = 0.009) ve CRP seviyesinin (OR = 4.600, 95% CI: 1.724–12.271, P = 0.002) LINC00707 ekspresyonu ile ilişkili olduğunu gösterdi. Potansiyelle karıştırıcı değişkenler için düzeltme yapıldıktan sonra, çok değişkenli lojistik regresyon; SCI'nın ASIA sınıflandırmasının (OR = 2.598, 95% CI: 1.088–6.203, P = 0.032), FIM skorunun (OR = 0.303, 95% CI: 0.102–0.902, P = 0.032) ve CRP seviyesinin (OR = 3.202, 95% CI: 1.024–10.015, P = 0.045) LINC00707 ekspresyonu ile ilişkili bağımsız faktörler olduğunu gösterdi (Tablo 2). Daha şiddetli bir ASIA sınıflandırması ve yükselmiş CRP seviyeleri daha yüksek LINC00707 ekspresyonu ile ilişkiliyken, daha yüksek bir FIM skoru daha düşük LINC00707 ekspresyonu ile ilişkiliydi. Bu ilişkiler, LINC00707'nin SCI'nın patolojik sürecine dahil olma olasılığını daha da desteklemektedir.
| Ögeler | Tek değişkenli regresyon analizi | Çok değişkenli regresyon analizi | ||||
| OR | 95% CI | P-değeri | OR | 95% CI | P-değeri | |
| Yaş | 1.176 | 0.475-2.914 | 0.725 | |||
| Cinsiyet | 1.303 | 0.524-3.240 | 0.57 | |||
| SCI ASIA Sınıflandırması | 3.912 | 1.792-8.537 | <0.001 | 2.598 | 1.088-6.203 | 0.032 |
| SCI ASIA sınıflandırması | 0.588 | 0.497-1.480 | 0.582 | |||
| Taktil duyum skoru | 0.85 | 0.343-2.105 | 0.725 | |||
| Akmestezi skoru | 0.854 | 0.345-2.119 | 0.734 | |||
| Egzersiz skoru | 0.392 | 0.153-1.006 | 0.051 | |||
| FIM skoru | 0.281 | 0.108-0.729 | 0.009 | 0.303 | 0.102-0.902 | 0.032 |
| IL-1β | 1.181 | 0.475-2.935 | 0.72 | |||
| IL-6 | 1.453 | 0.585-3.608 | 0.42 | |||
| TNF-α | 1.304 | 0.526-3.233 | 0.567 | |||
| CRP | 4.6 | 1.724-12.271 | 0.002 | 3.202 | 1.024-10.015 | 0.045 |
| Kısaltmalar: OR, Odds Oranı; CI, güven aralığı; ASIA, Amerikan Spinal Yaralanma Derneği; FIM, Fonksiyonel bağımsızlık ölçümü; IL, İnterlökin; TNF, Tümör nekroz faktörü; CRP, C-reaktif protein. | ||||||
Tablo 2: LINC00707 ekspresyonu ile ilişkili faktörlerin lojistik regresyon analizi. Bu tablo, omurilik yaralanması olan hastalarda LINC00707 ekspresyonu ile ilişkili klinik faktörleri belirlemek için kullanılan tek değişkenli ve çok değişkenli lojistik regresyon analizlerini sunmaktadır. Sonuçlar, %95 güven aralıkları ve ilgili P değerleri ile birlikte odds oranları olarak sunulmuştur. Kısaltmalar: OR, odds oranı; CI, güven aralığı; ASIA, Amerikan Omurilik Yaralanmaları Derneği; FIM, Fonksiyonel Bağımsızlık Ölçütü; IL, interlökin; TNF, tümör nekroz faktörü; CRP, C-reaktif protein.
LINC00707 nakavdownu, LPS ile stimüle edilmiş BV2 hücrelerinde inflamasyonu ve oksidatif stresi azalttı
BV2 hücreleri artan LPS konsantrasyonları (0, 10, 20, 50, 100, 150 veya 200 ng/mL) ilele tedavi edildi. RT-qPCR analizi, 100, 150 ve 200 ng/mL LPS tedavisi sonrasında LINC00707 ekspresyonunun anlamlı derecede arttığını göstermiştir (Şekil 2A, P < 0.001, n = 6). Bu bulgulara ve önceki raporlara27˒28 dayanarak, in vitro SCI modelini kurmak için 100 ng/mL LPS seçilmiştir. Kontrol grubuyla karşılaştırıldığında, LPS ile stimüle edilmiş BV2 hücrelerinde LINC00707 ekspresyonu anlamlı düzeyde yükselmiştir. si-LINC00707 ile transfeksiyon, LINC00707 ekspresyonunu etkili bir şekilde baskılamıştır (Şekil 2B, P < 0.001, n = 6).
Ardından, LINC00707 nakavtunun inflamasyon ve oksidatif stres üzerindeki etkileri değerlendirildi. LPS stimülasyonu; IL-1β (Şekil 2C, P < 0.001, n = 5), IL-6 (Şekil 2D, P < 0.001, n = 5) ve TNF-α (Şekil 2E, P < 0.001, n = 5) sekresyonunun yanı sıra hücre içi ROS seviyelerini (Şekil 2F, P < 0.001, n = 6) ve MDA içeriğini (Şekil 2G, P < 0.001, n = 5) anlamlı derecede artırmıştır. Buna karşılık, LPS stimülasyonu antioksidan markerlar olan SOD (Şekil 2H, P < 0.001, n = 6) ve GSH (Şekil 2I, P < 0.001, n = 5) seviyelerini anlamlı derecede düşürmüştür. LINC00707'nin susturulması, LPS ile stimüle edilmiş BV2 hücrelerinde pro-inflamatuar sitokin sekresyonunu ve pro-oksidatif stres marker seviyelerini anlamlı derecede azaltırken, antioksidan seviyelerini yeniden restore etmiştir. Bu bulgular, LINC00707 nakavtunun BV2 hücrelerinde LPS ile indüklenen inflamatuar yanıtları ve oksidatif stresi hafiflettiğini göstermektedir.
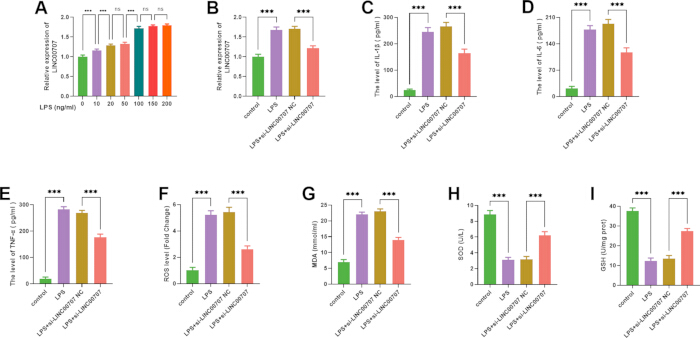
Şekil 2: LINC00707 knockdown işleminin LPS ile stimüle edilmiş BV2 hücrelerinde inflamasyon ve oksidatif stres üzerindeki etkileri. BV2 hücreleri 100 ng/mL lipopolisakkarit (LPS) ile stimüle edilmiştir. (A) Farklı LPS konsantrasyonları ile işlem gören BV2 hücrelerinde LINC00707 ekspresyonu RT-qPCR ile ölçülmüştür. (B) LINC00707 ekspresyonu LPS grubunda artmış ve si-LINC00707 transfeksiyonu sonrası azalmıştır. (C–E) ELISA, pro-inflamatuar faktörlerin sekresyonunun LPS grubunda arttığını ve LINC00707 knockdown işlemi sonrası azaldığını göstermiştir. (F–G) Reaktif oksijen türleri (ROS) seviyeleri ve malondialdehit (MDA) içeriği LPS grubunda artmış ve LINC00707 knockdown işlemi sonrası azalmıştır. (H–I) Süperoksit dismutaz (SOD) aktivitesi ve indirgenmiş glutatyon (GSH) seviyeleri LPS grubunda azalmış ve LINC00707 knockdown işlemi sonrası artmıştır. **P < 0.001; ns, anlamlı değil. n ≥ 5. İstatistiki analizler tek yönlü ANOVA ve ardından Tukey’in HSD post hoc testi kullanılarak gerçekleştirilmiştir. Veriler ortalama ± SD olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
LINC00707, miR-145-5p için moleküler bir sünger görevi görür
LINC00707'nin biyolojik fonksiyonunun altında yatan moleküler mekanizmayı araştırmak için, potansiyel hedef miRNA'ları tahmin etmek amacıyla ENCORI veri tabanı kullanılmıştır. Biyoenformatik analiz, LINC00707 ile miR-145-5p arasında tamamlayıcı bağlanma dizileri olduğunu belirlemiştir (Şekil 3A). Çift lüsiferaz raporlayıcı deneyleri, WT-LINC00707 konstrüktündeki lüsiferaz aktivitesinin miR-145-5p mimiği ile anlamlı şekilde azaldığını ve miR-145-5p inhibitörü ile arttığını göstermiştir. Buna karşılık, her iki işlem de MUT-LINC00707 konstrüktündeki lüsiferaz aktivitesini etkilememiştir (Şekil 3B, P < 0.001, n = 4); bu durum LINC00707 ve miR-145-5p arasındaki doğrudan etkileşimi doğrulamaktadır.
RT-qPCR analizi, SCI'lı hastalarda plazma miR-145-5p ekspresyonunun sağlıklı deneklere kıyasla anlamlı düzeyde azaldığını göstermiştir (Şekil 3C, P < 0.001). Ek olarak, LINC00707 ekspresyonu miR-145-5p ekspresyonu ile negatif korelasyon göstermiştir (Şekil 3D, P < 0.001) ve plazma miR-145-5p seviyeleri, SCI şiddetinin artışıyla birlikte kademeli olarak azalmıştır (Şekil 3E, P < 0.001). In vitro çalışmalarda, LPS ile stimüle edilen BV2 hücrelerinde miR-145-5p ekspresyonu kontrol hücrelerine kıyasla anlamlı düzeyde azalırken, LINC00707 knockdown işlemi miR-145-5p ekspresyonunu yeniden geri kazandırmıştır (Şekil 3F, P < 0.001, n = 6). Bu bulgular, LINC00707'nin miR-145-5p'yi sekestre ederek ve böylece SCI'nın patolojik seyri sırasında ekspresyonunu düzenleyerek yarışmacı endojen bir RNA (ceRNA) olarak görev yaptığını göstermektedir.
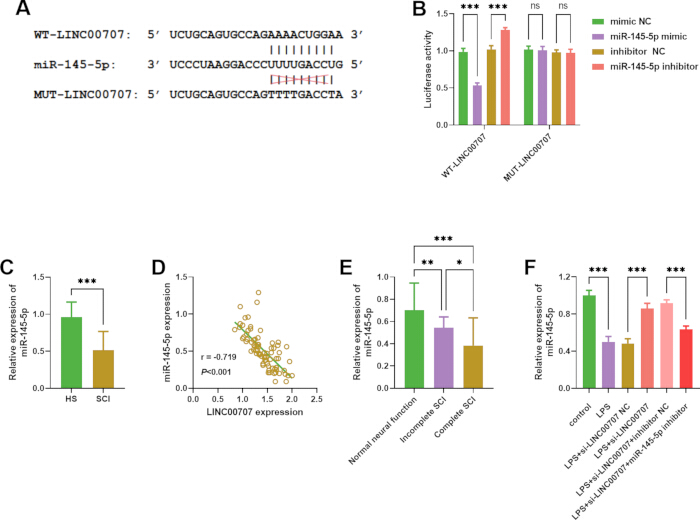
Şekil 3. LINC00707, miR-145-5p için moleküler bir sünger görevi görür. (A) ENCORI veri tabanı, LINC00707 ve miR-145-5p arasında tamamlayıcı bağlanma sekansları öngörmüştür. (B) Çift lusiferaz raporlayıcı testi, LINC00707 ve miR-145-5p arasındaki etkileşimi doğrulamıştır. İstatistiksel analiz, iki yönlü ANOVA ve ardından Tukey'nin HSD post hoc testi kullanılarak gerçekleştirilmiştir. (C) RT-qPCR, plazma miR-145-5p ekspresyonunun SCI'lı hastalarda azaldığını göstermiştir. İstatistiksel analiz, bağımsız örneklemler t-testi kullanılarak gerçekleştirilmiştir. (D) SCI'lı hastalarda LINC00707 ekspresyonu, miR-145-5p ekspresyonu ile negatif korelasyon göstermiştir. İstatistiksel analiz, Pearson korelasyon analizi kullanılarak gerçekleştirilmiştir. (E) Plazma miR-145-5p ekspresyonu, ASIA sınıflandırmasına göre artan SCI şiddetiyle birlikte azalmıştır. İstatistiksel analiz, tek yönlü ANOVA ve ardından Tukey'nin HSD post hoc testi kullanılarak gerçekleştirilmiştir. (F) miR-145-5p ekspresyonu LPS grubunda azalmış, si-LINC00707 transfeksiyonu sonrası artmış ve miR-145-5p inhibitörü transfeksiyonu sonrası azalmıştır. İstatistiksel analiz, tek yönlü ANOVA ve ardından Tukey'nin HSD post hoc testi kullanılarak gerçekleştirilmiştir. P < 0.05, *P < 0.01 ve **P < 0.001; ns, anlamlı değil. Sağlıklı denekler, n = 30; SCI'lı hastalar, n = 75; hücre deneyleri, n ≥ 4. Veriler ortalama ± SD olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
miR-145-5p inhibisyonu, LPS ile stimüle edilmiş BV2 hücrelerinde inflamasyonu ve oksidatif stresi artırmıştır
miR-145-5p'nin rolünü araştırmak için, BV2 hücreleri bir miR-145-5p inhibitörü veya ilgili negatif kontrol ile transfekte edilmiştir. Ardından, inflamatuar sitokinlerin ve oksidatif stres belirteçlerinin seviyeleri değerlendirilmiştir. İnhibitör negatif kontrol grubuyla karşılaştırıldığında, miR-145-5p inhibisyonu IL-1β (Şekil 4A, P < 0.001, n = 5), IL-6 (Şekil 4B, P < 0.001, n = 5) ve TNF-α (Şekil 4C, P < 0.001, n = 5) sekresyonunu anlamlı düzeyde artırmıştır. Ek olarak, hücre içi ROS seviyeleri (Şekil 4D, P < 0.001, n = 6) ve MDA içeriği (Şekil 4E, P < 0.001, n = 5) anlamlı düzeyde artarken, SOD (Şekil 4F, P < 0.001, n = 6) ve GSH (Şekil 4G, P < 0.001, n = 5) seviyeleri anlamlı düzeyde azalmıştır. Bu bulgular, miR-145-5p inhibisyonunun, LINC00707 nakavtının BV2 hücrelerinde LPS ile indüklenen inflamasyon ve oksidatif stres üzerindeki koruyucu etkilerini tersine çevirdiğini göstermektedir.
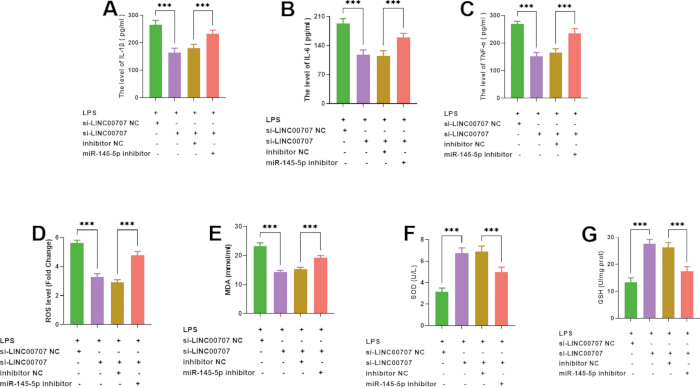
Şekil 4: miR-145-5p inhibisyonunun BV2 hücrelerinde inflamasyon ve oksidatif stres üzerindeki etkileri. (A–C) ELISA, miR-145-5p inhibitörü ile transfeksiyondan sonra pro-inflamatuar faktörlerin sekresyonunun anlamlı derecede arttığını göstermiştir. (D–E) Reaktif oksijen türleri (ROS) seviyeleri ve malondialdehit (MDA) içeriği, miR-145-5p inhibitörü ile transfeksiyondan sonra anlamlı derecede artmıştır. (F–G) Süperoksit dismutaz (SOD) aktivitesi ve glutatyon (GSH) seviyeleri, miR-145-5p inhibitörü ile transfeksiyondan sonra anlamlı derecede azalmıştır. **P < 0.001. n ≥ 5. İstatistiksel analizler, tek yönlü ANOVA ve ardından Tukey'in HSD post hoc testi kullanılarak gerçekleştirilmiştir. Veriler ortalama ± SD olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
TRAF6, miR-145-5p'nin bir hedef geni olarak tanımlandı
miRDB veri tabanı, TRAF6'yı miR-145-5p'nin potansiyel bir hedefi olarak öngörmüştür. TRAF6'nın 3′ UTR bölgesi ile miR-145-5p arasındaki tamamlayıcı bağlanma dizileri belirlenmiştir (Şekil 5A). Çift-lüsiferaz raporlayıcı analizleri, WT-TRAF6 konstrüktündeki lüsiferaz aktivitesinin miR-145-5p mimiği ile anlamlı derecede azaldığını ve miR-145-5p inhibitörü ile arttığını göstermiştir. Buna karşılık, her iki işlemin de MUT-TRAF6 konstrüktündeki lüsiferaz aktivitesini etkilemediği görülmüş (Şekil 5B, P < 0.001, n = 4), böylece TRAF6'nın miR-145-5p'nin doğrudan bir hedefi olduğu doğrulanmıştır.
RT-qPCR analizi, plazma TRAF6 mRNA ekspresyonunun SCI'lı hastalarda anlamlı şekilde arttığını göstermiştir (Şekil 5C, P < 0.001). TRAF6 ekspresyonu, miR-145-5p ekspresyonu ile negatif korelasyon göstermiştir (Şekil 5D, P < 0.001) ve plazma TRAF6 mRNA seviyeleri SCI şiddeti ile birlikte artmıştır (Şekil 5E, P < 0.001). In vitro çalışmalarda, TRAF6 ekspresyonu LPS ile stimüle edilen BV2 hücrelerinde kontrol grubuna kıyasla anlamlı şekilde artmış, ancak LINC00707 knockdown işlemi sonrası anlamlı şekilde azalmıştır (Şekil 5F, P < 0.001, n = 6). Aksine, miR-145-5p inhibisyonu TRAF6 ekspresyonunu geri döndürmüştür (Şekil 5G, P < 0.001, n = 6). Bu bulgular, LINC00707'nin TRAF6 ekspresyonunu miR-145-5p sinyal yolu üzerinden düzenlediğini göstermektedir.
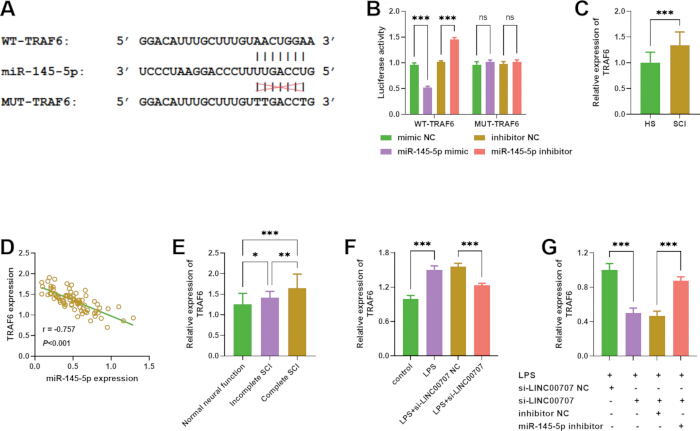
Şekil 5: TRAF6, miR-145-5p'nin hedef genidir. (A) miRDB veri tabanı, TRAF6 ve miR-145-5p arasında tamamlayıcı bağlanma dizileri öngörmüştür. (B) Bir çift lüsiferaz raporlayıcı testi, TRAF6 ve miR-145-5p arasındaki hedefleme ilişkisini doğrulamıştır. İstatistiksel analiz, iki yönlü ANOVA ve ardından Tukey’s HSD post hoc testi kullanılarak yapılmıştır. (C) RT-qPCR, plazma TRAF6 ekspresyonunun SCI olan hastalarda arttığını göstermiştir. İstatistiksel analiz, bağımsız örneklemler t-testi kullanılarak yapılmıştır. (D) SCI olan hastalarda TRAF6 ekspresyonu, plazma miR-145-5p ekspresyonu ile negatif korelasyon göstermiştir. İstatistiksel analiz, Pearson korelasyon analizi kullanılarak yapılmıştır. (E) ASIA sınıflandırmasına göre SCI şiddeti arttıkça plazma TRAF6 ekspresyonu artmıştır. İstatistiksel analiz, tek yönlü ANOVA ve ardından Tukey’s HSD post hoc testi kullanılarak yapılmıştır. (F) LPS ile stimüle edilmiş BV2 hücrelerinde TRAF6 ekspresyonu artmış ve LINC00707 knockdown işlemi sonrası azalmıştır. İstatistiksel analiz, tek yönlü ANOVA ve ardından Tukey’s HSD post hoc testi kullanılarak yapılmıştır. (G) miR-145-5p inhibisyonu sonrası TRAF6 ekspresyonu artmıştır. İstatistiksel analiz, tek yönlü ANOVA ve ardından Tukey’s HSD post hoc testi kullanılarak yapılmıştır. P < 0.05, *P < 0.01 ve **P < 0.001; ns, anlamlı değil. Sağlıklı denekler, n = 30; SCI olan hastalar, n = 75; hücre deneyleri, n ≥ 4. Veriler ortalama ± SD olarak sunulmuştur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
VERİ KULLANILABİLİRLİĞİ:
Mevcut çalışmada üretilen ve/veya analiz edilen veri setleri Zenodo deposunda mevcuttur: https://doi.org/10.5281/zenodo.21470454.
Tartışma
Omurilik yaralanması (SCI), omurilik üzerinden nöral iletimin bozulması veya tamamen kaybıyla sonuçlanan; ömür boyu süren motor, duyusal ve otonom disfonksiyonların yanı sıra derin fizyolojik ve psikolojik sonuçlara yol açan, merkezi sinir sisteminin ciddi bir travmatik bozukluğudur29˒30. Bu bozulmaların şiddeti genellikle SCI'nın yaygınlığına paralel olarak artar. Mevcut çalışmada, SCI'lı hastalarda plazma LINC00707 ekspresyonunun arttığı ve dolaşımdaki pro-inflamatuar sitokin seviyeleriyle pozitif korelasyon gösterdiği saptanmıştır; bu durum, LINC00707'nin SCI ile ilişkili inflamasyon ve oksidatif stres üzerinde potansiyel bir rolü olduğunu göstermektedir. Bu klinik bulgulara dayanarak, SCI patogenezi bağlamında, LPS ilele tedavi edilmiş BV2 hücrelerinde LINC00707'nin inflamasyon ve oksidatif stres üzerindeki düzenleyici rolünü daha ayrıntılı olarak inceledik.
LINC00707'nin, çok sayıda sinyal yolağının regülasyonu aracılığıyla çeşitli biyolojik süreçlerde rol oynadığı ortaya konmuştur.31Hücre proliferasyonu, apoptoz, migrasyon ve invazyonu düzenlemenin yanı sıra, LINC00707'nin enflamatuar yanıtlara ve oksidatif strese katıldığı gösterilmiştir.18˒32˒33Önceki çalışmalar, akciğerde LINC00707 ekspresyonunun arttığını bildirmiştir.34, meme35, servikal36ve karaciğer kanserleri37burada, downstream moleküler hedefleri düzenleyerek hastalık progresyonunu teşvik eder. Ek olarak, LINC00707'nin susturulması, miR-103a-3p düzenlemesi yoluyla kemik iliği mezenkimal kök hücrelerinin osteojenik diferansiyasyonunu teşvik eder38Zou ve ark. LINC00707'nin MRC-5 hücrelerinde LPS tarafından indüklenen inflamatuar yanıtları teşvik ettiği ve böylece pro-inflamatuar rolünü desteklediği daha ileri düzeyde gösterilmiştir33Bu bulgularla uyumlu olarak, mevcut çalışma LINC00707 ekspresyonunun LPS ile stimüle edilmiş BV2 hücrelerinde anlamlı düzeyde arttığını, buna karşın LINC00707 nakdown'unun proinflamatuar sitokinlerin ve oksidatif stres belirteçlerinin üretimini azalttığını göstermiştir. Bu bulgular, LINC00707'nin inflamatuar ve oksidatif stres yanıtlarındaki rolünü daha da desteklemektedir.
LINC00707'nin; romatizmal kalp hastalığı39, mesane kanseri40 ve osteojenik farklılaşma41 dahil olmak üzere çeşitli patolojik durumlarda miR-145-5p'yi düzenleyerek rekabetçi endojen bir RNA (ceRNA) olarak işlev gördüğü rapor edilmiştir. Önceki çalışmalar, miR-145-5p'nin inflamasyonu ve oksidatif stresi baskılayarak42˒43 ayrıca anjiyogenezi ve nöral onarımı destekleyerek44˒45 SCI'da koruyucu etkiler sergilediğini göstermiştir. Bu gözlemlerle tutarlı olarak, mevcut çalışma, SCI hastalarında ve LPS ile stimüle edilmiş BV2 hücrelerinde plazma miR-145-5p ekspresyonunun azaldığını göstermiştir. LINC00707'nin miR-145-5p ile doğrudan etkileşime girdiği daha sonra doğrulanmış ve LINC00707'nin susturulmasının miR-145-5p ekspresyonunu geri kazandırdığı görülmüştür. Ayrıca, miR-145-5p inhibisyonu, LINC00707 nakavtunun inflamatuar yanıtlar ve oksidatif stres üzerindeki koruyucu etkilerini tersine çevirmiştir. Bu bulgular, LINC00707'nin miR-145-5p aracılı inflamatuar ve oksidatif stres yanıtlarını düzenleyerek SCI progresyonuna katkıda bulunabileceğini düşündürmektedir.
Önceki çalışmalar, TRAF6'nın merkezi sinir sistemi hastalıklarında önemli bir rol oynadığını göstermiştir46. Kanıtlar ayrıca, TRAF6'nın inhibisyonunun SCI'yı önemli ölçüde iyileştirebileceğine işaret etmektedir47˒48. Mevcut çalışma, TRAF6'nın miR-145-5p'nin doğrudan bir hedefi olduğunu daha ayrıntılı olarak belirlemiştir. TRAF6 ekspresyonu, SCI'lı hastalarda ve LPS ile stimüle edilmiş BV2 hücrelerinde anlamlı şekilde artmıştır. Ek olarak, LINC00707 nakavdown'u TRAF6 ekspresyonunu azaltırken, miR-145-5p inhibisyonu TRAF6 ekspresyonunu geri döndürmüştür. Bu bulgular, SCI sırasında LINC00707'nin TRAF6 ekspresyonunu miR-145-5p aracılığıyla regüle edebileceğini önermektedir.
Bu çalışma, LINC00707'nin miR-145-5p/TRAF6 sinyal eksenini düzenleyerek SCI sırasında mikroglia aracılı enflamatuar yanıtları ve oksidatif stres hasarını etkileyebileceğini öne sürmektedir. Bu bulgu, LINC00707 nakavtının PC-12 hücrelerinde LPS ile indüklenen enflamasyonu ve apoptozu hafiflettiğini gösteren Zhu et al. tarafından yapılan önceki bir raporla uyumludur; ancak, söz konusu çalışmadaki temel mekanizma miR-30a-5p/Neurod1 eksenini içermekteydi18. Topluca, bu bulgular LINC00707'nin tek bir miRNA hedefi üzerinden değil, hücre tipine bağlı olarak farklı miRNA ağları üzerinden etki edebileceğini ve böylece SCI'nın patolojik süreçlerine katkıda bulunabileceğini göstermektedir.
Bu çalışmanın birkaç kısıtlılığı bulunmaktadır. İlk olarak, sadece TRAF6 mRNA ekspresyonu değerlendirilmiş, protein ekspresyonu ise incelenmemiştir. LINC00707, miR-145-5p ve TRAF6 arasındaki düzenleyici ilişkiyi daha ayrıntılı karakterize etmek için gelecek çalışmalara Western blot analizi gibi protein düzeyinde doğrulama işlemleri dahil edilmelidir. İkinci olarak, bu çalışma in vivo doğrulama yapılmaksızın, sadece LPS ile stimüle edilmiş BV2 mikroglial modeli kullanılarak hücresel düzeyde yürütülmüştür. SCI mikroçevresinin karmaşıklığı göz önüne alındığında, mevcut bulgular in vivo patofizyolojik koşulları tam olarak yansıtmayabilir. LINC00707'nin SCI hayvan modellerinde benzer pro-inflamatuar etkiler gösterip göstermediği henüz onaylanmamıştır. Gelecekteki çalışmalar, LINC00707'nin düzenleyici rolünü ve altında yatan moleküler mekanizmaları doğrulamak için SCI hayvan modelleri oluşturacaktır. Üçüncü olarak, sonuçlarımız LINC00707'nin inflamasyonu etkilemek için miR-145-5p/TRAF6 sinyal yolu üzerinden hareket ettiğini gösterse de, LINC00707'nin yalnızca belirli miRNA'lar için bir sünger görevi mi gördüğü yoksa belirli proteinlere doğrudan bağlanıp bağlanmadığı bilinmemektedir. Bu mekanistik detayların netleştirilmesi için daha fazla çalışmaya ihtiyaç vardır. Dördüncü olarak, ROC eğrisi analizi tek bir tıp merkezinden alınan verilere ve nispeten az sayıda hastaya dayanmaktadır. Bu durum yanlılığa yol açmış olabilir ve bulguları öncül kılabilir. Tanımlanan biyobelirteçlerin diagnostik potansiyelini doğrulamak için daha fazla hastanın katıldığı, daha geniş kapsamlı çok merkezli çalışmalara ihtiyaç vardır.
Bu çalışmanın bulguları, LINC00707'nin SCI için potansiyel bir keşifsel plazma biyobelirteci ve terapötik hedef teşkil edebileceğini göstermektedir. Ancak, bu bulguların klinik uygulamalara dönüştürülmesi birkaç ek adım gerektirecektir. İlk olarak, plazma LINC00707'nin potansiyel ayırıcı değeri, daha geniş çok merkezli kohortlarda, bağımsız doğrulama kohortlarında ve ilgili travma veya inflamatuar kontrol gruplarında değerlendirilmelidir. Klinik değerlendirme ve radyolojik inceleme, SCI tanısı için temel yaklaşımlar olmaya devam etmektedir. İkinci olarak, LINC00707'yi hedeflemenin terapötik potansiyeli, etkinliğini ve güvenliğini değerlendirmek amacıyla hayvan modellerinde incelenmelidir. Sonuç olarak, laboratuvardan kliniğe giden yoldaki boşluğu doldurmak için hala yapılması gereken önemli çalışmalar olsa da, LINC00707/miR-145-5p/TRAF6 sinyal yolunun modüle edilmesi, SCI hastalarında nöroinflamasyonu ve oksidatif stresi azaltmak için yeni bir yaklaşım sunabilir.
Genel olarak, SCI olan hastalarda ve LPS ile stimüle edilmiş BV2 hücrelerinde plazma LINC00707 ve TRAF6 ekspresyonları artarken, miR-145-5p ekspresyonu azalmıştır. LINC00707 nakavdownu, miR-145-5p/TRAF6 sinyal ekseni aracılığıyla inflamatuar yanıtları ve oksidatif stresi hafifletmiştir; bu durum, söz konusu düzenleyici yolağın SCI için potansiyel bir terapötik hedef olabileceğini göstermektedir.
Açıklamalar
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Bu çalışma, Hebei Tıp Bilimleri Araştırma Projesi (Hibe No. 20251479) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 1,5 mL mikrosantrifüj tüpü | KIRGEN | KG2211 | Polipropilen geçmeli kapaklı tüp, DNaz/RNaz içermeyen, pirojenik olmayan, maksimum santrifüj kuvveti 20.000 × g, RNA/protein numune saklama ve santrifüjleme için. |
| 6 Kuyucuklu Hücre Kültür Plakası | Corning | 3516 | düz tabanlı, steril ve tekli paketlenmiş, TC işlem görmüş polistiren plak; kuyu hacmi 16,8 mL ve büyüme alanı 9,5 cm²'dir |
| Kan Alma İğnesi | Becton, Dickinson and Company | 367283 | BD Vacutainer Tek Kullanımlık Kan Alma İğnesi. Bir ucu venipuncture (venöz ponksiyon) için, diğer ucu ise çoklu tüp toplama işlemi için tutucuya ve vakumlu tüpe bağlanan çift uçlu iğne tasarımı. Yerleştirme sırasında hasta rahatsızlığını en aza indirmek için silikon kaplıdır. |
| Kan Toplama Tüpleri | Becton, Dickinson and Company | 367605 | BD Vacutainer Vakumlu Kan Toplama Tüpleri. Farklı renk kodlu tıpalar, belirli laboratuvar testlerine karşılık gelen çeşitli katkı maddelerini belirtir. |
| BV2 ölümsüzleştirilmiş fare mikroglial hücre hattı | Şanghay Biyoteknoloji Enstitüsü Hücre Kaynak Merkezi | RRID: CVCL_0182 | Mikrogliaya özgü belirteçleri (Iba1, CD11b, F4/80) stabil olarak eksprese eden ölümsüzleştirilmiş fare mikroglia hücre hattı. LPS stimülasyonu sonrası BV2 hücreleri pro-inflamatuar sitokinler (IL-1β, IL-6, TNF-α) ve spinal kord yaralanması sonrası in vivo mikroglial inflamatuar aktivasyonu taklit etmek için hücre içi ROS ve MDA biriktirirler. Hücreler, %10 FBS ve 1 ile desteklenmiş yüksek glukozlu DMEM içerisinde kültüre edilir× penisilin-streptomisin, şunlarda korundu: 37 °C %5 CO ile2 nemlendirilmiş inkübatör; %70 yoğunluğa ulaştığında pasajlanmış–Aşırı aktivasyonu önlemek için %80 konfluens. |
| Hücre Malondialdehit (MDA) Analiz Kiti | Nanjing Jiancheng Biyomühendislik Enstitüsü | A003-4-2 | Lipid peroksidasyonunun bir belirteci olan hücresel malondialdehidin kantitatif tespiti için mikroplaka tabanlı kolorimetrik kit. MDA, ısıtma altında tiyobarbitürik asit (TBA) ile reaksiyona girerek kırmızı adüktler oluşturur; absorbans, mikroplaka spektrofotometresi ile 532 nm'de tespit edilir. Hücre lizat örnekleri için optimize edilmiş, yüksek hacimli 96 kuyucuklu operasyon yapısına sahip olup lineer kantifikasyon aralığı mikrogliyalarda düşükten orta seviyeye kadar olan lipid oksidasyon seviyelerini kapsar. |
| CO2 inkübator | Thermo Scientific | 3111 | Nemlendirilmiş, su ceketli CO₂2 184 L iç hacimli, IR CO2 inkübatör2 sensör, mikrobiyal kontaminasyonu minimize etmek için HEPA hava filtrasyon sistemi. Kültür ortamını şu değerde sabit tutar: 37 °C, %5 CO22 ve uzun süreli adherent hücre kültürü için doygun nem. |
| Dual Luciferase Raporlayıcı Gen Analiz Kiti | Beyotime Biotechnology | RG028 | Bu çift lüsiferaz kiti, hücre lizatlarında ateş böceği lüsiferazı ve Renilla lüsiferazının ardışık kantitatif tespitini sağlar. Ateş böceği lüsiferaz sinyali ilk olarak lüsiferin substratı kullanılarak ölçülür; ardından gelen Renilla tespit reaktifi, etkisizleştirme sağlayan güçlü bir söndürücü içerir. >%99,9 kalıntı ateş böceği lüminesansı, koelenterazin substratı ile saf Renilla sinyal okuması sağlar. Kit, 96 kuyucuklu mikroplaka lüminometresi ile uyumlu, adherent hücre lizi için özel hücre lizis tamponu içerir. Ateş böceği reaktifi, doğrudan kullanım için önceden karıştırılmış sıvı formdadır; ceRNA hedef doğrulaması için normalize edilmiş bağıl lüsiferaz aktivitesini (Ateş böceği/Renilla oranı) hesaplamak amacıyla ateş böceği ve Renilla lüminesans değerleri ardışık olarak kaydedilir. |
| Dulbecco Modifiyeli Eagle Besiyeri | Gibco | 11995065 | DMEM, birçok farklı memeli hücresinin büyümesini desteklemek için yaygın olarak kullanılan bazal bir besiyeridir. Bu formülasyon yüksek glikoz, L-glutamin, fenol kırmızısı ve sodyum piruvat içerir. Genellikle %10 Fetal Bovine Serum (FBS) ile desteklenmesi gerekir ve 5–%10 CO2 fizyolojik pH'ı korumak için ortam. |
| Fetal Bovin Serum | HER ŞEY YEŞİL | 13011-8611 | Premium kalite FBS, düşük endotoksin, mikoplazma & bakteriyofaj negatif, hücre büyümesini desteklemek için DMEM'e %10 v/v oranında eklenmiş. |
| GraphPad Prism Versiyon 9 | GraphPad Software, San Diego, CA, ABD | NA | İn vitro hücre deney verileri için özelleşmiş bilimsel grafik çizim ve istatistiksel analiz yazılımı. Tüm ham qPCR, ELISA, oksidatif stres ve dual-luciferase lüminesans absorbans değerleri; normallik doğrulaması ve parametrik/nonparametrik grup karşılaştırmaları yapmak, tüm kantitatif şekilleri oluşturmak ve ortalama hesaplamak amacıyla Prism 9'a aktarıldı. ± SD, kesin P değerleri ve %95 GA ve dergi yayın standartlarını karşılayan yüksek çözünürlüklü (300 dpi) şekiller dışa aktarılmıştır. Tüm grafiklerin orijinal .prism proje kaynak dosyaları, gerekli olduğu üzere genel veri deposuna aktarılmıştır. |
| IBM SPSS Statistics Sürüm 26.0 | IBM Corporation, Armonk, NY, ABD | NA | Klinik örnek bazal veri sıralaması, normallik testi (Shapiro-Wilk testi), bağımsız/eşleşmemiş t-testi ve Tukey sonrası tek yönlü ANOVA için kullanılan kapsamlı istatistiksel yazılım paketi’çoklu karşılaştırma düzeltmesi, Mann-Whitney U nonparametrik testi ve tüm insan ve hücresel kantitatif veri setleri için kesin P-değerleri ile %95 güven aralıklarının hesaplanması gerçekleştirilmiştir. Tüm klinik hasta demografik ve laboratuvar verileri bu platform üzerinden işlenmiş ve analiz edilmiştir. |
| IL-1β SimpleStep ELISA Kiti | Abcam | ab255730 | Bu tek yıkamalı sandviç kolorimetrik ELISA kiti, tüm tespit prosedürünü 90 dakika içinde tamamlayan tescilli SimpleStep teknolojisini benimsemektedir. Sıçan interlökin-1'i kantitatif olarak ölçer.β hücre kültürü süpernatantı, serum, EDTA/sitrat/heparin plazma örneklerinde. Tespit hassasiyeti 26,58 pg/mL'ye ulaşırken, doğrusal kantifikasyon aralığı 54,69'dur–3500 pg/mL. Ön kaplamalı, ayrılabilir 8 kuyucuklu şerit mikroplaka dahildir. IL-1 miktarını hesaplamak için absorbans sinyalleri, bir mikroplaka okuyucu aracılığıyla 450 nm'de tespit edilir.β konsantrasyon |
| IL-6 SimpleStep ELISA Kiti | Abcam | ab234570 | Hücre kültürü süpernatantı, serum, sitrat/EDTA/heparin plazma örneklerinde sıçan interlökin-6 (IL-6) düzeylerinin kantitatif tespiti için optimize edilmiş, sandviç kolorimetrik SimpleStep ELISA kiti. Toplam analiz süresini 90 dakikaya indirmek için tek aşamalı inkübasyon ve tek yıkama iş akışını benimseyen kit, 43 pg/mL tespit hassasiyetine ve 125 pg/mL ile 8000 pg/mL arasında doğrusal kantifikasyon aralığına sahiptir. Ön kaplamalı, ayrılabilir 8 kuyucuklu şerit mikroplaka içeriğe dahildir; nihai IL-6 konsantrasyonu hesaplaması için absorbans değerleri, bir mikroplaka spektrofotometresi kullanılarak 450 nm'de okunur. |
| LightCycler Çok Kuyucuklu Plaka 96, beyaz | Roche LifeScience, İsviçre | 4729692001 | LightCycler 96 gerçek zamanlı PCR cihazı için özel olarak optimize edilmiş, yarı etekli beyaz polipropilen 96 kuyucuklu reaksiyon plakaları. Beyaz kuyucuk duvarları, arka plan floresan girişimini azaltır ve düşük bolluktaki transkriptlerin saptama hassasiyetini artırmak için sinyal yansımasını güçlendirir. Üniform ince duvar tasarımı, tüm kuyucuklarda tutarlı termal iletkenlik garanti eder ve 10 ile ... arası reaksiyon hacimleriyle uyumludur. 50 μLRNA kaynaklı cDNA amplifikasyon analizleri için DNaz/RNaz içermeyen ve pirojen içermeyen. |
| LipofectamineTM 3000 Transfeksiyon Reajeni | Thermo Fisher Scientific | L3000015 | P3000 Enhancer ile birlikte kullanılan lipid nanopartikül transfeksiyon reaktifi, düşük sitotoksisite ile BV2 mikroglial hücrelerinde yüksek verimli siRNA/plazmid transfeksiyonu sağlar. |
| lnRcute lncRNA Birinci Zincir cDNA Sentez Kiti | TIANGEN | KR202-02 | Bu kit; düşük bolluğa sahip, değişken GC içeriğine ve karmaşık ikincil yapılara sahip uzun kodlamayan RNA'ların (lncRNA'lar) ters transkripsiyonu için özel olarak optimize edilmiştir. Kit, ters transkripsiyon öncesinde genomik DNA kontaminasyonunu gidermek için bağımsız bir gDNA uzaklaştırma tamponu ve tam uzunluktaki lncRNA şablonlarını zenginleştirmek için özelleştirilmiş bir lnR-RT primer karışımı içerir. Modifiye edilmiş ters transkriptaz, 10 ng ile 2 ng arasında değişen toplam RNA girdisinden uzun zincirli cDNA'ların verimli bir şekilde sentezlenmesini sağlar. |
| lnRcute lncRNA qPCR Tespit Kiti (SYBR Green) | TIANGEN | FP402 | lncRNA kantifikasyonu için özel olarak geliştirilmiş SYBR Green tabanlı bir kantitatif PCR ön karışımıdır. Antikor aracılı sıcak başlangıçlı (hot-start) DNA polimeraz, yüksek amplifikasyon özgüllüğü sağlar; H-kompetitör bileşenleri, yüksek GC içerikli lncRNA şablonlarının ikincil yapı girişimlerini giderir. lnRcute lncRNA ters transkripsiyon kiti ile elde edilen cDNA ile uyumludur ve düşük bolluktaki lncRNA'ların bağıl ekspresyon kantifikasyonu için uygundur. |
| miR-145-5p oligonükleotidleri | Generalbiol (Wuhan, Çin) | NA | BV2 hücrelerinde miR-145-5p aktivitesini modüle etmek için kullanılan sentetik miR-145-5p mimiği, inhibitörü ve ilgili negatif kontrol oligonükleotidleri. Ekspresyon, inflamasyon, oksidatif stres ve dual-lüsiferaz raporlayıcı deneylerinde kullanılmıştır. |
| miRcute Plus miRNA Birinci Zincir cDNA Kiti | TIANGEN | KR211-02 | Deneysel iş akışını basitleştirmek için birleşik poli (A) kuyruklama ve ters transkripsiyon tek tüp reaksiyonu benimsenmiştir. Enzim karışımı; özellikle olgun tek zincirli miRNA'ları hedefleyen ve saç tokası yapılarına sahip pre-miRNA'lardan kaynaklanan amplifikasyon girişimlerini önleyen E. coli poli (A) polimeraz, RNase H eksik ters transkriptaz ve RNase inhibitörü içerir. Hücre lizatı, plazma ve doku örneklerinden ekstrakte edilen miRNA'lar için uygundur. |
| miRcute Plus miRNA qPCR Tespit Kiti (SYBR Green) | TIANGEN | FP411 | Olgun miRNA kantifikasyonu için optimize edilmiş ve miRcute ters transkripsiyon ürünleriyle tam uyumlu SYBR Green premix. Tampon sistem, kısa miRNA amplikonları için primer bağlanma verimliliğini artırır, stabil floresans sinyalleri sağlar ve zayıf eksprese edilen miRNA'ların tespiti için yüksek hassasiyet sunar. Normalizasyon için iç referans olarak yaygın şekilde U6 snRNA kullanılır. |
| Penisilin-Streptomisin Çözeltisi (100×) | Beyotime Biotechnology | C0222 | Bakteriyel kontaminasyonu önlemek için kültür ortamında 1:100 çalışma dilüsyonunda kullanılan, 10.000 U/mL penisilin ve 10 mg/mL streptomisin içeren steril filtrelenmiş karışım. |
| Seyreltici İçeren Reaktif Oksijen Türleri Analiz Kiti | Beyotime Biotechnology | S0034M | Bu kit, hücre içi reaktif oksijen türlerini (ROS) nicelendirmek için DCFH-DA floresan probunu kullanır. DCFH-DA hücre membranından geçer ve hücre içi esteraz tarafından DCFH'ye hidrolize edilir; DCFH ise ROS tarafından oksitlenerek floresan DCF oluşturur. Yüksek kapasiteli tespit için 96 kuyucuklu mikroplaka ve floresan mikroplaka okuyucu ile uyumludur (Ex = 488 nm, Em = 525 nm). Boyama sinyallerini stabilize etmek için özel prob dilüenti ve Rosup pozitif kontrol reaktifi ile donatılmış olup, hücre lizizi gerektirmeksizin adheran BV2 mikroglia oksidatif stres tespitine uygundur. |
| İndirgenmiş Glutatyon (GSH) Analiz Kiti | Nanjing Jiancheng Bioengineering Institute | A006-1-2 | Temel hücre içi antioksidan olan indirgenmiş glutatyonun (GSH) saptanması için kolorimetrik mikroplaka kiti. GSH, sarı renkli kromojenik bir ürün oluşturmak üzere ditiodinitrobenzoik asit (DTNB) ile reaksiyona girer ve absorbans, mikroplaka okuyucuda 405 nm'de saptanır. Kit, hücre lizatı antioksidan analizi için standart tüp protokolünü yüksek kapasiteli 96 kuyucuklu mikroplaka saptamasına uyarlamaktadır. |
| si-LINC00707 | GenePharma (Şanghay, Çin) | NA | BV2 hücrelerinde LINC00707 ekspresyonunu azaltmak için tasarlanmış küçük interferans RNA. LINC00707 nakavtının inflamatuar yanıtlar, oksidatif stres, miR-145-5p ekspresyonu ve TRAF6 ekspresyonu üzerindeki etkilerini değerlendirmek amacıyla fonksiyon kaybı deneylerinde kullanılmıştır. |
| si-LINC00707 NC | GenePharma (Şanghay, Çin) | Uygulanamaz | si-LINC00707 transfeksiyona negatif kontrol olarak kullanılan, hedef dışı küçükle giriyen RNA. Transfeksiyon prosedürünün ve siRNA maruziyetinin spesifik olmayan etkilerini kontrol etmek için kullanılır. |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | 4992777 | Hot-start Taq polimeraz, dNTP'ler, SYBR Green I ve floresan normalizasyonu için ROX referans boyası içeren, mRNA relatif kantifikasyonu için üniversal SYBR Green kantitatif PCR premiksi. Düşük spesifik olmayan amplifikasyon, stabil amplifikasyon verimliliği; mRNA hedef gen kantifikasyonunda (TRAF6, GAPDH vb.) yaygın olarak uygulanır. |
| Thermo ScientificTM SorvallTM ST 8 Küçük Tezgah Üstü Santrifüj | Thermo Scientific | 75200709 | 24 adede kadar işlem yapabilen, klinik laboratuvarlar için klasik tercih × Bir seferde 5/7 mL'lik kan toplama tüpleri. R serisi, düşük sıcaklıkta santrifüj gerektiren numunelerin daha iyi korunmasını sağlayan soğutmalı versiyondur. |
| TIANScript II Birinci Zincir cDNA Sentez Kiti | TIANGEN | GKR107-02 | 12 kb'ye kadar uzunlukta cDNA üretmek amacıyla genel mRNA ters transkripsiyonu için tasarlanmıştır. Esnek priming stratejileri için hem Oligo (dT) 15 hem de rastgele hekzamer primerler ile donatılmıştır. Modifiye M-MLV ters transkriptaz, yüksek GC içeriğine sahip ve karmaşık ikincil mRNA yapılarını verimli bir şekilde okur ve sonraki mRNA qPCR amplifikasyonları için geniş uyumluluk sunar. |
| TNF-α SimpleStep ELISA Kiti | Abcam | ab236712 | Sıçan tümör nekroz faktörünün kantitatif tespiti için optimize edilmiş, hızlı tek yıkamalı SimpleStep sandviç ELISA kitiα (TNF-α) hücre kültürü süpernatantında, serumda ve çeşitli plazma örneklerinde. Toplam analiz süresi 90 dk olup, 1,04 pg/mL düzeyinde ultra yüksek hassasiyete ve 15,63 pg/mL ile 1000 pg/mL arasında doğrusal saptama aralığına sahiptir. Çıkarılabilir 8 ile donatılmış×12 kuyucuklu ön kaplamalı plaka; final TNF- için 450 nm'deki OD değerleri kaydedilirα nicel hesaplama. |
| Toplam Süperoksit Dismutaz (T-SOD) Analiz Kiti | Nanjing Jiancheng Bioengineering Institute | A001-3-2 | Toplam SOD enzimatik aktivitesini belirlemek için WST-1 kromojenik mikroplaka kiti. SOD, süperoksit anyon radikallerini yok eder ve WST-1 indirgenme reaksiyonunu inhibe eder. Aktivite hesaplaması için mikroplaka okuyucu aracılığıyla 450 nm'de absorbans kaydedilir. Hücre homojenatı, serum ve doku örnekleri için uygun olan kit, antioksidan kapasite değerlendirmesi için stabil renk gelişimi ve yüksek tekrarlanabilirlik sunar. |
| TRIzol Reaktifi | Thermo Fisher Scientific | 15596018 | Kültürlenmiş mikroglia hücrelerinden toplam RNA'nın tek adımda izolasyonu için monofazik fenol-guanidin izotiyosiyanat reaktifi; aynı örneklerden DNA ve proteini eş zamanlı olarak ekstrakte eder. |
Kaynaklar
- Trueblood CT, Singh A, Cusimano MA, Hou S. Autonomic dysreflexia in spinal cord injury: mechanisms and prospective therapeutic targets. Neuroscientist. 2024;30(5):597-611.
- Anderson MA, Squair JW, Gautier M, Hutson TH, Kathe C, Barraud Q, et al. Natural and targeted circuit reorganization after spinal cord injury. Nat Neurosci. 2022;25(12):1584-96.
- Liu Y, Yang X, He Z, Li J, Li Y, Wu Y, et al. Spinal cord injury: global burden from 1990 to 2019 and projections up to 2030 using Bayesian age-period-cohort analysis. Front Neurol. 2023;14:1304153. doi:10.3389/fneur.2023.1304153.
- Sekhon LH, Fehlings MG. Epidemiology, demographics, and pathophysiology of acute spinal cord injury. Spine (Phila Pa 1976). 2001;26(24 Suppl):S2-12.
- Chan BC, Cadarette SM, Wodchis WP, Krahn MD, Mittmann N. The lifetime cost of spinal cord injury in Ontario, Canada: a population-based study from the perspective of the public health care payer. J Spinal Cord Med. 2019;42(2):184-93.
- Van Broeckhoven J, Sommer D, Dooley D, Hendrix S, Franssen A. Macrophage phagocytosis after spinal cord injury: when friends become foes. Brain. 2021;144(10):2933-45.
- Xiao S, Zhong N, Yang Q, Li A, Tong W, Zhang Y, et al. Aucubin promoted neuron functional recovery by suppressing inflammation and neuronal apoptosis in a spinal cord injury model. Int Immunopharmacol. 2022;111:109163. doi:10.1016/j.intimp.2022.109163.
- Li F, Wang Y, Zheng K. Microglial mitophagy integrates the microbiota-gut-brain axis to restrain neuroinflammation during neurotropic herpesvirus infection. Autophagy. 2023;19(2):734-6.
- Beattie MS. Inflammation and apoptosis: linked therapeutic targets in spinal cord injury. Trends Mol Med. 2004;10(12):580-3.
- Brennan FH, Li Y, Wang C, Ma A, Guo Q, Li Y, et al. Microglia coordinate cellular interactions during spinal cord repair in mice. Nat Commun. 2022;13(1):4096. doi:10.1038/s41467-022-31797-0.
- Kwon HS, Koh SH. Neuroinflammation in neurodegenerative disorders: the roles of microglia and astrocytes. Transl Neurodegener. 2020;9(1):42. doi:10.1186/s40035-020-00221-2.
- Zhong J, Qiu X, Yu Q, Chen H, Yan C. A novel polysaccharide from Acorus tatarinowii protects against LPS-induced neuroinflammation and neurotoxicity by inhibiting TLR4-mediated MyD88/NF-κB and PI3K/Akt signaling pathways. Int J Biol Macromol. 2020;163:464-75.
- Han X, Xu T, Fang Q, Zhang H, Yue L, Hu G, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via .the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010. doi:10.1016/j.redox.2021.102010.
- Simpson DSA, Oliver PL. ROS generation in microglia: understanding oxidative stress and inflammation in neurodegenerative disease. Antioxidants (Basel). 2020;9(8):743. doi:10.3390/antiox9080743.
- Onoguchi-Mizutani R, Akimitsu N. Long noncoding RNA and phase separation in cellular stress response. J Biochem. 2022;171(3):269-76.
- Zhang Y. LncRNA-encoded peptides in cancer. J Hematol Oncol. 2024;17(1):66. doi:10.1186/s13045-024-01591-0.
- Hu W, Zhou J, Jiang Y, Bao Z, Hu X. Silencing of LINC00707 alleviates brain injury by targeting miR-30a-5p to regulate microglia inflammation and apoptosis. Neurochem Res. 2024;49(1):222-33.
- Zhu S, Zhou Z, Li Z, Shao J, Jiao G, Huang YE, et al. Suppression of LINC00707 alleviates lipopolysaccharide-induced inflammation and apoptosis in PC-12 cells by regulating miR-30a-5p/Neurod1. Biosci Biotechnol Biochem. 2019;83(11):2049-56.
- Long J, Lan W, Shen B, Liao F, Cai H, Li J, et al. LncRNA-miRNA-mRNA network in schizophrenia. J Mol Neurosci. 2025;75(3):104.
- De Gasperi R, Graham ZA, Harlow LM, Bauman WA, Qin W, Cardozo CP. The signature of microRNA dysregulation in muscle paralyzed by spinal cord injury includes downregulation of microRNAs that target myostatin signaling. PLoS One. 2016;11(12):e0166189.
- Lin Y, Liu L, Lin Y, Yang R, Liao S, Xu M, et al. MiR-145 alleviates sepsis-induced inflammatory responses and organ injury by targeting ADAM17. Front Biosci (Landmark Ed). 2024;29(1):44. doi:10.31083/j.fbl2901044.
- Wang C, Gu L, Yang Z, Su J, Wen X. Mume Fructus total flavonoids modulate miR-145-3p expression to inhibit lipopolysaccharide-induced inflammatory cytokine production in BV2 cells. Comb Chem High Throughput Screen. 2026;29. doi:http://dx.doi.org/10.2174/0113862073447531260414195911
- Chen S, Wei J, Huang L, Feng B, Guo W. MiRNA-194-5p inhibits inflammatory response after spinal cord injury via .regulating TRAF6. Minerva Med. 2020;111(6):603-6.
- Lu Y, Jiang BC, Cao DL, Zhang ZJ, Zhang X, Ji RR, et al. TRAF6 upregulation in spinal astrocytes maintains neuropathic pain by integrating TNF-α and IL-1β signaling. Pain. 2014;155(12):2618-29.
- Zhao Y, Li T, Zhang L, Yang J, Zhao F, Wang Y, et al. TRAF6 promotes spinal microglial M1 polarization to aggravate neuropathic pain by activating the c-JUN/NF-κB signaling pathway. Cell Biol Toxicol. 2024;40(1):54. doi:10.1007/s10565-024-09900-6.
- Kirshblum SC, Memmo P, Kim N, Campagnolo D, Millis S, American Spinal Injury Association. Comparison of the revised 2000 American Spinal Injury Association classification standards with the 1996 guidelines. Am J Phys Med Rehabil. 2002;81(7):502-5.
- Xue MT, Sheng WJ, Song X, Shi YJ, Geng ZJ, Shen L, et al. Atractylenolide III ameliorates spinal cord injury in rats by modulating microglial/macrophage polarization. CNS Neurosci Ther. 2022;28(7):1059-71.
- Zhang H, Xiang L, Yuan H, Yu H. PTPRO inhibition ameliorates spinal cord injury through shifting microglial M1/M2 polarization via .the NF-κB/STAT6 signaling pathway. Biochim Biophys Acta Mol Basis Dis. 2024;1870(5):167141. doi:10.1016/j.bbadis.2024.167141.
- Eli I, Lerner DP, Ghogawala Z. Acute traumatic spinal cord injury. Neurol Clin. 2021;39(2):471-88.
- Brouwers E, van der Meent H, Curt A, Maier DD, Abel RF, Weidner N, et al. Recovery after traumatic thoracic and lumbar spinal cord injury: the neurological level of injury matters. Spinal Cord. 2020;58(9):980-7.
- Yao Q, Li Z, Chen D. Review of LINC00707: a novel lncRNA and promising biomarker for human diseases. Front Cell Dev Biol. 2022;10:813963. doi:10.3389/fcell.2022.813963.
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Zou X, Gao C, Shang R, Chen H, Wang B. Knockdown of lncRNA LINC00707 alleviates LPS-induced injury in MRC-5 cells by acting as a ceRNA of miR-223-5p. Biosci Biotechnol Biochem. 2021;85(2):315-23.
- Ma T, Ma H, Zou Z, He X, Liu Y, Shuai Y, et al. The long intergenic noncoding RNA 00707 promotes lung adenocarcinoma cell proliferation and migration by regulating Cdc42. Cell Physiol Biochem. 2018;45(4):1566-80.
- Li H, Liu Q, Hu Y, Yin C, Zhang Y, Gao P. LINC00707 regulates autophagy and promotes the progression of triple-negative breast cancer by activation of the PI3K/AKT/mTOR pathway. Cell Death Discov. 2024;10(1):138. doi:10.1038/s41420-024-01906-7.
- Fang F, Guo C, Zheng W, Li Q. LINC00707 promotes cell proliferation in cervical cancer via .the miR-374c-5p/SDC4 axis. Biomed Res Int. 2022;2022:5793912. doi:10.1155/2022/5793912.
- Wei M, Lu L, Ma J, Luo Z, Tan X, Wang J. LINC00707 impairs natural killer cell antitumor activity in hepatocellular carcinoma by decreasing YTHDF2 stability. J Cell Mol Med. 2024;28(5):e18106.
- Liu J, Wu M, Feng G, Li R, Wang Y, Jiao J. Downregulation of LINC00707 promotes osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating DKK1 via .targeting miR-103a-3p. Int J Mol Med. 2020;46(3):1029-38.
- Zhao W, Huang G, Ye J. LINC00707 inhibits myocardial fibrosis and immune disorder in rheumatic heart disease by regulating miR-145-5p/S1PR1. Biotechnol Genet Eng Rev. 2024;40(4):3073-86.
- Gao T, Ji Y. Long noncoding RNA LINC00707 accelerates tumorigenesis and progression of bladder cancer via .targeting the miR-145/CDCA3 regulatory loop. Urol Int. 2021;105(9–10):891-905.
- Cai WL, Zeng W, Liu HH, Zhu BY, Liu JL, Liu Y. LncRNA LINC00707 promotes osteogenic differentiation of hBMSCs through the Wnt/β-catenin pathway activated by the LINC00707/miR-145/LRP5 axis. Eur Rev Med Pharmacol Sci. 2020;24(1):18-28.
- Jiang L, Wei ZC, Xu LL, Yu SY, Li C. Inhibition of miR-145-5p reduces spinal cord injury-induced inflammatory and oxidative stress responses via .affecting the Nurr1-TNF-α signaling axis. Cell Biochem Biophys. 2021;79(4):791-9.
- Jiang Z, Zhang J. Mesenchymal stem cell-derived exosomes containing miR-145-5p reduce inflammation in spinal cord injury by regulating the TLR4/NF-κB signaling pathway. Cell Cycle. 2021;20(10):993-1009.
- Park AJ, Fandl HK, Garcia VP, Coombs GB, DeSouza NM, Greiner JJ, et al. Differential expression of vascular-related microRNA in circulating endothelial microvesicles in adults with spinal cord injury: a pilot study. Top Spinal Cord Inj Rehabil. 2023;29(2):34-42. doi:10.46292/sci22-00032.
- Gao C, Yin F, Li R, Ruan Q, Meng C, Zhao K, et al. MicroRNA-145-mediated KDM6A downregulation enhances neural repair after spinal cord injury via .the NOTCH2/Abcb1a axis. Oxid Med Cell Longev. 2021;2021:2580619. doi:10.1155/2021/2580619.
- Dou Y, Tian X, Zhang J, Wang Z, Chen G. Roles of TRAF6 in the central nervous system. Curr Neuropharmacol. 2018;16(9):1306-13.
- Huang T, Jia Z, Fang L, Cheng Z, Qian J, Xiong F, et al. Extracellular vesicle-derived miR-511-3p from hypoxia-preconditioned adipose mesenchymal stem cells ameliorates spinal cord injury through the TRAF6/S1P axis. Brain Res Bull. 2022;180:73-85.
- Wei J, Wang J, Zhou Y, Yan S, Li K, Lin H. MicroRNA-146a contributes to SCI recovery via .regulating TRAF6 and IRAK1 expression. Biomed Res Int. 2016;2016:4013487.