Bu protokol, Styphnolobium japonicum tomurcuk ekstraktındaki rutin ve kuersetinin hedeflenmiş HPLC kantifikasyonunu tanımlamakta ve ekstraktı mikroglial, mikroglia-nöron ko-kültürü ve nitrik oksit eksikliği kaynaklı hipertansiyon modellerinde değerlendirmektedir. İş akışı, ekstrakt hazırlama sürecini nöroinflamatuar, nöronal stres, kan basıncı ve paraventriküler çekirdek son noktalarıyla ilişkilendirmektedir.
Araştırma makalesi
HPLC ile Miktarı Belirlenmiş Styphnolobium japonicum Ekstresi, L-NAME Uygulanan Sıçanlarda Mikroglial İnflamasyonu ve Hipertansiyonu Azaltır
* These authors contributed equally
Bu makalede
Özet
Özet
Hipotalamik paraventriküler çekirdekteki (PVN) nöroinflamasyon, sempatik eksitasyona ve hipertansiyona katkıda bulunabilir. Hedefli yüksek performanslı sıvı kromatografisi (HPLC) ile rutin ve kuersetin miktarları belirlenmiş bir Styphnolobium japonicum tomurcuk ekstraktını (SJBE; tarihsel olarak Sophora japonica) değerlendirdik. Ekstrakt; angiotensin II (Ang II) ile stimüle edilmiş BV-2 mikroglia hücrelerinde, BV-2/mHypoA-2/10 çözünür faktör ko-kültürlerinde, in vitro yüksek sodyumlu nöronal stres koşulunda ve Nω-nitro-L-arginin metil ester (L-NAME) ile indüklenmiş nitrik oksit eksikliği hipertansiyonu olan sıçanlarda test edildi. Sitotoksik olmayan çalışma konsantrasyonlarında SJBE, BV-2 hücrelerindeki inflamatuar ve oksidatif stres sonlanım noktalarını azalttı; daha yüksek angiotensin dönüştürücü enzim 2 (ACE2), Mas reseptörü (MasR) ve angiotensin-(1-7) [Ang-(1-7)] markerları ile ilişkilendirildi. Ko-kültürde SJBE, inflamatuar transferi ve nöronal stresi azalttı. Oral SJBE, kuyruk manşeti kan basıncı ölçümlerini düşürdü ve daha yüksek PVN ACE2/MasR ile Ang-(1-7), daha düşük Iba-1 ve c-Fos boyanması ile daha düşük dolaşımdaki norepinefrin ve sitokin düzeyleri ile ilişkili bulundu. MLN-4760, ACE2 katılımı için in vitro fonksiyonel destek sağladı, ancak herhangi bir in vivo yolak blokajı veya beyin maruziyeti farmakokinetiği gerçekleştirilmedi. Bu nedenle sonuçlar, merkezi yolak nedenselliğini kanıtlamaksızın, SJBE tedavisi, azalmış nöroinflamatuar sinyal iletimi ve düşük kan basıncı arasındaki ilişkiyi desteklemektedir.
Giriş
Botanik ekstraktlar, vasküler ve nöroimmün hastalıkların çok bileşenli modülatörleri olarak giderek daha fazla çalışılmaktadır. Bu ekstraktların yorumlanması, net kaynak kimliğine, analitik kapsama ve kimyasal tutarlılığa bağlıdır. Tarihsel olarak Sophora japonica L. olarak bilinen Styphnolobium japonicum (L.) Schott, kurutulmuş çiçek tomurcuğu materyali olan Flos Sophorae Immaturus veya Huai Mi1,2 sağlar. Rutin, diğer biyoaktif flavonoidleri de içeren bu materyalin temel kalite belirtecidir3. Ekstraksiyon çalışmaları, rutin ve ilgili flavonoidlerin geri kazanımı için geleneksel ve yoğunlaştırılmış yaklaşımları değerlendirmiştir4,5,6. Yakın tarihli bir çalışma ayrıca S. japonicum için daha çevreci bir rutin ekstraksiyon iş akışını tanımlamaktadır7. Hedef odaklı HPLC, önceden tanımlanmış belirteçlerin verimli nicelendirmesini sağlarken, daha geniş kimyasal tutarlılığı ve partiler arası tutarlılığı değerlendirmek için kromatografik parmak izi veya çok bileşenli profilleme gereklidir; bu nedenle, mevcut rutin ve kuersetin ölçümleri eksiksiz bir fitokimyasal profil olarak yorumlanmamalıdır.
Rutin ve kuersetin, nörovasküler inflamasyonda S. japonicum kaynaklı ekstraktların incelenmesi için makul bir farmakolojik temel oluşturmaktadır. Rutin ve S. japonicum çiçek preparatlarının, NF-kappaB bağlantılı yanıtlar ve nöroinflamasyon dahil olmak üzere azalmış inflamatuar sinyalleşme ile ilişkili olduğu belirtilmiştir8. Deneysel modeller, rutini azalmış nöroinflamasyon ve NF-kappaB ile ilişkili doku hasarıyla daha fazla ilişkilendirmektedir9. Kuersetin ayrıca kardiyovasküler biyoaktivite ve iyileştirilmiş inflamatuar-redoks dengesi ile ilişkilendirilmiştir10,11. Mikroglial modellerde kuersetin; aktivasyonu, oksidatif stresi ve Toll-benzeri reseptör 4 (TLR4) ile ilişkili inflamatuar sinyalleşmeyi baskılayabilmektedir12,13.
Hipertansiyon sadece vasküler bir bozukluk değildir. Merkezi inflamatuar devreler de sempatik sürücüyü sürdürebilir. Paraventriküler nukleus (PVN), kardiyovasküler tonusu düzenleyen nöroendokrin ve otonom sinyalleri entegre eder. Beyin ve PVN mikroglial sitokinleri nörojenik hipertansiyon ile ilişkilendirilmiştir14 ve PVN mikrogliaları hemodinamik bozulmayı algılayıp sempatik eksitasyonu teşvik edebilir15. Bu gözlemler, PVN içindeki mikroglia-nöron iletişimini, nörojenik kan basıncı artışını azaltmayı amaçlayan müdahaleler için ilgili bir hedef haline getirmektedir16.
Renin-anjiyotensin sisteminin ACE2/Ang-(1-7)/Mas reseptörü (MasR) kolu, bu merkezi ağ içinde koruyucu bir yolak sağlar17,18. PVN'deki ACE2 aşırı ifadesi, anjiyotensin II kaynaklı hipertansiyonu hafifletir ve nöroinflamasyonun azalmasıyla ilişkilendirilmiştir19. PVN'deki endojen Ang-(1-7) sinyalleri ayrıca sempatik çıkışı modüle eder20. Ang II, PVN mikroglial hücrelerinde anjiyotensin II tip 1 reseptörü (AT1)/TLR4 ile ilişkili redoks yolaklarını aktive ederek renin-anjiyotensin stresini nöroinflamasyonla ilişkilendirebilir21. Yüksek sodyumlu hücre koşulu, L-NAME hayvan modelinin bir alternatifi olarak değil, sadece in vitro bir stres testi olarak kullanılmıştır. Hedefli HPLC ile rutin ve kuersetin miktarları belirlenen S. japonicum tomurcuk ekstraktının (SJBE), bu mikroglia-nöron arayüzündeki mikroglial inflamasyonu baskılayıp baskılayamadığı henüz çözülmemiştir. Mevcut iş akışı, hedefli marker kantifikasyonunu mikroglial, çözünür faktör ko-kültürü ve L-NAME kaynaklı nitrik oksit eksikliğine bağlı hipertansiyon modelleriyle birleştirir. Bu çalışma, beyin maruziyetinin gösterilmesi veya kapsamlı fitokimyasal profilleme için değil, belirli bir SJBE preparasyonunun hipotez odaklı karşılaştırması için tasarlanmıştır; L-NAME deneyi spesifik olarak PVN kaynaklı nörojenik hipertansiyonu modellemez. Burada, SJBE'nin Ang II kaynaklı mikroglial inflamasyonu baskılayıp baskılamadığı, hipotalamik nöronlardaki inflamatuar sinyalleri sınırlayıp sınırlamadığı ve L-NAME ile tedavi edilen sıçanlarda kan basıncını düşürüp düşürmediği ve bu sonuçların ACE2/Ang-(1-7)/MasR markerları ile ilişkili olup olmadığı test edilmiştir.
Protokol
Tüm hayvan prosedürleri Shanxi Datong Üniversitesi Biyomedikal Araştırma Etik İnceleme Komitesi tarafından onaylanmış (Onay No. 2021029; onay süresi, Ağustos 2021'den Şubat 2024'e kadar) ve laboratuvar hayvanlarının bakımı ve kullanımıyla ilgili kurumsal kılavuzlara uygun olarak yürütülmüştür. Kullanılan reaktifler ve ekipmanlar Materyal Tablosunda listelenmiştir.
Materyaller ve reaktifler
Styphnolobium japonicum (L.) Schott (sin. Sophora japonica L.; Fabaceae; Flos Sophorae Immaturus/Huai Mi) bitkisinin kurutulmuş, açılmamış çiçek tomurcukları kullanılmıştır. Botanik materyal, ekstraksiyon öncesinde Çin, Pekin'deki Ulusal Gıda ve İlaç Kontrol Enstitüleri'nden (NIFDC) alınan sertifikalı Sophorae Flos referans materyali (Katalog No. 121270; Parti No. 121270-201403) ile karşılaştırılarak doğrulanmıştır. Rutin (%98, HPLC) ve kuersetin (%98, HPLC) referans standartlar olarak kullanılmıştır. Ang II, MLN-4760, L-NAME ve valsartan belirtilen şekilde kullanılmıştır. Diğer reaktifler ve ekipmanlar Materyal Tablosu'nda listelenmiştir.
S. japonicum tomurcuk ekstresinin hazırlanması ve kalite kontrolü
Çiçek tomurcukları 80 °C'de sabit ağırlığa ulaşana kadar fırında kurutulmuş, öğütülmüş ve 85 mesh'lik bir elekten geçirilmiştir. Toz, 1:20 (w/v) materyal-solvent oranında %85 etanol ile 80 °C'de, ekstraksiyon başına 1,5 saat boyunca iki kez reflü ile ekstrakte edilmiştir. Filtratlar birleştirilmiş ve 60 °C'de indirgenmiş basınç altında koyu bir ekstrakt haline gelene kadar konsantre edilmiş, ardından −80 °C'de ön dondurma işlemine tabi tutulmuş ve 48–72 saat boyunca liyofilize edilmiştir. Ekstraksiyon verimi, kuru ekstrakt kütlesinin kuru ham ilaç kütlesine bölünmesiyle hesaplanmış ve porsiyonlanmış SJBE tozu, tekrarlanan dondurma-çözme döngülerini veya neme maruz kalmayı önleyecek koşullar altında saklanmıştır.
Yüksek performanslı sıvı kromatografisi (HPLC), UV-görünür fotodiyot dizisi dedektörle donatılmış bir ekipman kullanılarak gerçekleştirilmiştir. Analitler, 1,0 mL/dk hızında izokratik olarak iletilen metanol-su (65:35, v/v) ile C18 ters faz kolonunda (250 mm × 4,6 mm, 5 µm) ayrılmıştır. Kolon sıcaklığı 35 °C'de sabit tutulmuş, deteksiyon 360 nm'ye ayarlanmış, enjeksiyon hacmi 20 µL ve veri toplama süresi 20 dk olarak belirlenmiştir. SJBE, metanol içinde 1,0 mg/mL konsantrasyonda hazırlanmıştır. Yedi rutin kalibrasyon seviyesi 10 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL, 300 µg/mL ve 400 µg/mL; yedi kuersetin kalibrasyon seviyesi ise 0,5 µg/mL, 1 µg/mL, 2,5 µg/mL, 5 µg/mL, 10 µg/mL, 25 µg/mL ve 50 µg/mL olarak hazırlanmıştır. Standartlar ve numuneler 0,22 µm politetrafloroetilen membran filtrelerden geçirilmiş, filtratın ilk 0,5 mL'si atılmış ve geri kalanı HPLC viallerine aktarılmıştır. Her kalibrasyon seviyesi iki kez, her SJBE hazırlığı ise üç kez enjekte edilmiştir. Rutin ve kuersetin, otantik standartlarla ±%2 dahilinde tutunma zamanı eşleşmesi ve uyumlu fotodiyot dizisi spektrumları ile tanımlanmıştır. Her bir belirteç, dış standart kalibrasyonu ile kantifiye edilmiş ve dedektör yanıtı uygun kalibrasyon aralığının dışına çıktığında seyreltilen numuneler yeniden analiz edilmiştir.
Analitik performans, sistem uygunluğu ve seri değerlendirmesi
Lineerlik, belirtilen yedi seviyedeki konsantrasyona karşı pik alanının en küçük kareler regresyonu ile değerlendirildi. R2 değeri en az 0,999 olduğunda ve artık grafiği herhangi bir sistematik eğilim göstermediğinde kalibrasyon kabul edildi. Gözlemlenme sınırı ve tayin sınırı, sırasıyla yaklaşık 3 ve 10 sinyal-gürültü oranlarında belirlendi. Özgüllük; metanol kör örneği, karışık standart çözeltisi ve SJBE örneği kullanılarak kanıtlandı; birlikte elüe olan girişimlerin yokluğu ve analit spektrumlarının referans standartlarla uyumu doğrulandı.
Enjeksiyon hassasiyeti, karışık bir standartla yapılan altı ardışık enjeksiyon kullanılarak değerlendirildi. Gün içi hassasiyet, aynı gün gerçekleştirilen altı tayin ile, günler arası hassasiyet ise üç ardışık gün boyunca değerlendirildi. Tekrarlanabilirlik, bağımsız olarak hazırlanmış altı SJBE çözeltisi kullanılarak değerlendirildi ve otomatik örnekleyici stabilitesi 0 h, 4 h, 8 h, 12 h ve 24 h sürelerinde ölçüldü. Geri kazanım, her düzeyde üç bağımsız olarak ekleme yapılmış preparat kullanılarak, doğal marker düzeyinin %80, %100 ve %120'sinde değerlendirildi. Enjeksiyon hassasiyeti için pik alanı RSD ≤%2,0; hassasiyet, tekrarlanabilirlik ve stabilite için RSD ≤%3,0 ve ortalama geri kazanım için geri kazanım RSD ≤%3,0 olmak üzere %95,0–%105,0 değerleri kabul edildi.
Her analitik sekans öncesinde, karışık standart altı kez enjekte edildi. Alıkonma süresi RSD ≤1.0%, pik alanı RSD ≤2.0%, çözünürlük ≥1.5, kuyruklama faktörü ≤2.0 ve rutin piki için teorik plaka sayısı en az 5,000 olduğunda sistem uygunluğu kabul edildi. Herhangi bir kriter karşılanmadığında kolon yeniden dengelendi ve sistem uygunluk testi tekrarlandı.
Üç bağımsız SJBE ekstraksiyon partisi hazırlanmış ve analiz edilmiştir. Her parti için tam 360 nm kromatogramı kaydedilmiş, rutin referans pik olarak tanımlanmış, tekrarlanabilir ortak pikler hizalanmış ve bağıl tutunma süresi, bağıl pik alanı ve tüm profil benzerliği hesaplanmıştır. Parti düzeyindeki parmak izi tutarlılığı; benzerlik ≥0,90, ortak pik bağıl tutunma süresi RSD ≤%2,0 ve bağıl pik alanı RSD ≤%5,0 değerlerinde kabul edilmiştir. Her parti için rutin ve quercetin içerikleri; genel ortalama, standart sapma ve varyasyon katsayısı ile birlikte raporlanmıştır.
Hücre kültürü ve uygulamalar
Fare BV-2 mikroglial hücre hattı ve fare mHypoA-2/10 hipotalamik nöronal hücre hattı ticari kaynaklardan temin edilmiştir. Hücreler, tedarikçi tarafından onaylanmış stoklardan çözülmüş, iki pasaj boyunca genişletilmiş, türe özgü bir PCR yöntemi kullanılarak tür kimlikleri doğrulanmış ve deneyler öncesinde ve her yeni vial çözüldükten sonra mikoplazma negatif oldukları onaylanmıştır. 3 ile 20. pasajlar arasındaki hücreler kullanılmıştır.
BV-2 ve mHypoA-2/10 hücreleri, %10 fetal sığır serumu ve %1 penisilin-streptomisin ile desteklenmiş yüksek glukozlu DMEM içerisinde, nemlendirilmiş %5 CO₂ inkübatöründe 37 °C'de kültüre edildi. Besiyeri her 2 günde bir yenilendi ve hücreler %70%–80 konfluensa ulaştığında %0,25 tripsin-EDTA kullanılarak pasajlandı. Hücreler işlemden 24 saat önce ekildi ve deneyler %70%–80 konfluens düzeyinde başlatıldı.
Canlılık taraması için BV-2 hücreleri 0 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL veya 400 µg/mL SJBE'ye 24 sa boyunca maruz bırakıldı. İnflamasyon deneyleri için hücreler, şekilde belirtilen konsantrasyondaki SJBE veya rutin (50 µmol/L) ile 1 sa ön inkübasyona tabi tutuldu ve ardından ortam değişimi yapılmadan 24 sa daha Ang II (100 nmol/L) eklendi. ACE2 inhibisyon deneyleri için, SJBE'den 30 dk önce MLN-4760 (10 µmol/L) eklendi, ardından SJBE'den 1 sa sonra Ang II eklendi ve tüm ajanlar 24 sa'lik stimülasyon süresi boyunca korundu. Alt mekanistik deneyler için SJBE 100 µg/mL konsantrasyonda kullanıldı. Ang II ve SJBE steril kültür ortamında hazırlanırken, MLN-4760 ve rutin dimetil sülfoksit stokları olarak hazırlandı. Final dimetil sülfoksit konsantrasyonu, taşıyıcı kontrol dahil olmak üzere ilgili tüm gruplarda %0.1 (v/v) seviyesinde tutuldu. Üç bağımsız kültür deneyi gerçekleştirildi ve her deneydeki teknik kuyucukların ortalaması alındı.
Hücre canlılık testi
BV-2 hücreleri, 96 kuyucuklu plakalara kuyucuk başına 5 × 10³ hücre olacak şekilde ekilmiş ve 24 saat boyunca kültüre edilmiştir. Besiyeri; 0 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL veya 400 µg/mL SJBE içeren taze besiyeri ile değiştirilmiştir. 24 saat sonra, 10 µL CCK-8 reaktifi eklenmiş ve hücreler 37 °C'de 1 saat boyunca inkübe edilmiştir. Absorbans 450 nm'de ölçülmüş ve hücre canlılığı, işlem görmemiş kontrol kuyucuklarına göre göreceli olarak ifade edilmiştir. Bağımsız kültür preparatları biyolojik tekrarlar olarak kullanılmış, teknik kuyucuklar ise yalnızca deney içi ortalama hesaplamaları için kullanılmıştır.
ROS düzeyinin saptanması
İşlemden sonra BV-2 hücreleri, 10 µmol/L DCFH-DA içeren serumsuz ortamda 37 °C'de karanlıkta 30 dk inkübe edildi. Hücreler iki kez PBS ile yıkandı, ortamdan ayrıldı, 40 µm'lik bir hücre süzgecinden geçirildi ve buz gibi soğuk PBS içinde yeniden süspande edildi. Bir akış sitometresi kullanılarak, 488 nm eksitasyon ve FITC/530 ± 15 nm emisyon kanalıyla örnek başına en az 10.000 tekil olay elde edildi. Ana hücre popülasyonu, ileri ve yan saçılma alanına göre kapılandı (gating), dubletler ileri saçılma alanı ile yükseklik karşılaştırması kullanılarak hariç tutuldu ve floresan sınırı boyanmamış bir kontrol kullanılarak belirlendi. Bu tek renkli analiz için spektral kompanzasyona gerek duyulmadı. Aynı kapı şablonu tüm kodlanmış örneklere uygulandı ve ortalama floresan yoğunluğu raporlandı.
TUNEL boyaması
Ko-kültür sonrası, alt bölmedeki nöronal hücreler %4 paraformaldehit ile 30 dk sabitlenmiş, üç kez PBS ile yıkanmış ve PBS içindeki %0,3 Triton X-100 ile 5 dk permeabilize edilmiştir. Kuyucuk başına toplam 50 µL TUNEL reaksiyon karışımı eklenmiş ve hücreler 37 °C'de karanlıkta 60 dk inkübe edilmiştir. Örnekler üç kez yıkanmış, çekirdekler 1 µg/mL DAPI ile 10 dk karşı boyanmış ve örnekler lam üzerine monte edilmiştir. Grup başına bağımsız olarak hazırlanan beş ko-kültürün her biri için, özdeş pozlama ayarları kullanılarak 200× büyütmede önceden seçilmiş, örtüşmeyen üç alan görüntülenmiştir. TUNEL-pozitif çekirdekler, ImageJ'de sabit bir eşik kullanılarak DAPI-pozitif çekirdeklerin yüzdesi olarak nicelendirilmiştir. İstatistiki analizden önce, tek bir kültür düzeyi değeri elde etmek için üç alanın ortalaması alınmıştır.
Nöron–mikroglia ko-kültür deneyi
Çözünür faktörler aracılı temassız iletişimi modellemek için 0,4 µm polikarbonat membranlara ve yaklaşık 0,33 cm2 büyüme alanına sahip yirmi dört kuyucuklu Transwell insertleri kullanılmıştır. Alt kuyucuklara 600 µL ortamda 1 × 10⁵ hücre olacak şekilde mHypoA-2/10 hücreleri, insertlere ise 100 µL ortamda 2 × 10⁵ hücre olacak şekilde BV-2 hücreleri ekilmiştir. Hücreler, birleştirme işleminden önce gece boyunca kültüre edilmiştir. Ang II, SJBE, MLN-4760, rutin ve bunlara karşılık gelen araçlar (vehicle), yukarıda açıklanan işlem sırasına göre üst BV-2 bölmesine uygulanmıştır. Ek yüksek sodyum stres grupları için, nihai konsantrasyonu 30 mmol/L artırmak amacıyla alt nöronal bölmeye NaCl eklenmiştir. Birleştirilen ko-kültürler 24 s boyunca muhafaza edilmiştir.
Mikroglial sitokin ve sinyalizasyon analizleri için üst bölme medyumu ve BV-2 hücreleri toplanırken; Ang-(1-7), qPCR, immunoblotting ve TUNEL analizleri için alt bölme medyumu ve nöronal hücreler ayrı ayrı toplandı. Birleştirilmiş bir insert-alt kuyu çifti tek bir deneysel birim olarak kabul edildi ve üç bağımsız ko-kültür deneyi gerçekleştirildi. Bu konfigürasyon çözünür faktör değişimini değerlendirdi ancak mikrogliaları SJBE'nin tek doğrudan hedefi olarak belirleyemedi. İzo-ozmotik bir kontrol dahil edilmediği için, NaCl koşulu sodyuma özgü etkileri ozmotik etkilerden ayırt edemedi.
Hipertansiyon hayvan modeli
Ticari kaynaklardan, 6–8 haftalık, 180–220 g ağırlığında ve spesifik patojenlerden arındırılmış erkek Wistar sıçanlar temin edildi. Sıçanlar, kafes başına üç adet olacak şekilde, 22 °C ± 2 °C sıcaklıkta, %50–60 bağıl nemde, 12 saatlik ışık/karanlık döngüsü altında, yeme ve suya serbest erişimle barındırıldı. Altlıklar haftada iki kez değiştirildi ve hayvanlar 7 gün boyunca aklimatize edildi. Hayvanlar günlük olarak gözlemlendi ve vücut ağırlıkları haftada iki kez kaydedildi. Nitrik oksit eksikliğine bağlı hipertansiyon, 3 hafta boyunca L-NAME (0,5% CMC-Na içinde 40 mg/kg/gün; 10 mL/kg) oral gavage yoluyla oluşturuldu. Model uygunluğu, randomizasyon öncesinde, art arda yapılan iki ölçümde sistolik kan basıncının ≥140 mmHg olması şeklinde tanımlandı. Bu model, nitrik oksit eksikliğine bağlı hipertansiyonu yeniden oluşturmuş olup nörojenik hipertansiyona özgü değildir.
Gruplandırma, uygulama ve örnek toplama
Sıçanlar, normal kontrol grubu ve L-NAME modelleme kohortuna ayrıldı. Model uygunluğu belirlendikten sonra, uygun hipertansif sıçanlar; model taşıyıcı, SJBE 100 mg/kg/gün, 200 mg/kg/gün, 400 mg/kg/gün veya valsartan 10 mg/kg/gün gruplarına atandı. Tüm gavage formülasyonları günde bir kez 10 mL/kg dozunda uygulandı ve kontrol grupları aynı hacimde %0,5 CMC-Na aldı. Grup başına altı sıçan (toplam 36 sıçan) nihai analiz örneğini oluşturdu. İlk kayıtlar, ölümler ve hariç tutmalar grup bazında ve nedenleriyle bildirildi. Model kaynaklı gruplar L-NAME protokolü altında tutulurken, günlük gavage uygulamasına 6 hafta boyunca devam edildi.
Çalışma sonunda, sıçanlar pentobarbital sodyum (50 mg/kg, intraperitonal) ile anestezi altına alındı ve pedal çekilme refleksinin kaybı doğrulandı. Abdominal aortadan EDTA tüplerine kan (4–6 mL) toplandı. Sıçanlar, derin anestezi altında kan kaybı ile ötanize edildi ve yaklaşık 200 mL buz gibi soğuk 0.9% salin ile transkardiyal olarak perfüze edildi. Kan örnekleri 4 °C'de 15 dk boyunca 2,000 × g hızda santrifüj edildi ve plazma −80 °C'de saklandı. Beyinler hemen çıkarıldı. Bir sıçan beyin atlası kullanılarak, bregmada yaklaşık −1.3 mm ile −2.1 mm arasını kapsayan koronal bir blok hazırlandı ve bilateral paraventriküler çekirdekler (PVN), orta hattın yaklaşık 0.3–0.6 mm lateraline ve kafatası yüzeyinin 7.4–8.2 mm ventraline mikrodisseksiyon ile alındı. Dokular, RNA ve protein analizleri için şok donduruldu veya 20 µm dondurulmuş kesitlerin hazırlanması için gömüldü.
Randomizasyon, tahsis gizleme, körleme ve dışlama kriterleri
Uygun kriterlere sahip hipertansif sıçanlar, vücut ağırlıkları ve başlangıç sistolik kan basınçlarına göre tabakalandırılmış ve altılı bloklar içeren, bilgisayar tarafından oluşturulmuş bir blok rastgeleştirme listesi kullanılarak atanmıştır. Dozajlama veya sonuç değerlendirmesi yapmayan bir araştırmacı, sekansı oluşturmuş, ardışık grup kodlarını hazırlamış ve tüm hayvanlar uygunluk kriterlerini karşılayana kadar atama listesini gizlemiştir. Kan basıncı, moleküler, biyokimyasal ve histolojik son noktalar için deney birimi olarak hayvan kabul edilmiştir.
Gavage formülasyonları, örnek tüpleri, doku alikotları, kesitler, görüntüler ve analiz plakaları, rastgele atanmış üç haneli hayvan kodlarıyla etiketlendi. Kan basıncı ölçümleri, densitometri, ELISA, görüntüleme ve görüntü analizi işlemlerini gerçekleştiren araştırmacılar, tedavi gruplarının dağılımına karşı körleme yöntemine tabi tutuldu. Kodlar, yalnızca önceden belirlenmiş kalite kontrolleri ve birincil analiz tamamlandıktan sonra açıldı. Hayvanlar; yalnızca tedaviyle ilgisi olmayan ölüm, ağır hastalık veya yaralanma durumlarında çalışma dışı bırakıldı. >%20 vücut ağırlığı kaybı, başarısız gavage, başarısız model indüksiyonu, tekrarlanan işlem sonrası yetersiz kuyruk manşeti (tail-cuff) kayıtları, örnek kaybı veya belgelenmiş analiz başarısızlığı. Tüm dışlamalar grup ve neden bazında raporlanmıştır. Önceden belirlenmiş bir güç hesaplaması mevcut olmadığından, grup başına n = 6 keşifsel mekanistik örneklem olarak kabul edilmiştir.
Kuyruk manşetli kan basıncı ölçümü
Kan basıncı, saat 09:00 ile 12:00 arasında sessiz bir odada, noninvaziv bir kuyruk manşonu sistemi kullanılarak ölçülmüştür. Sıçanlar, günde 15 dk boyunca sabitleyicide tutularak 5 ardışık gün boyunca alıştırılmıştır. Her ölçüm gününde hayvanlar 10 dk boyunca 33 °C ± 1 °C'de ısıtılmış, ardından sabitleyicide 5 dk daha tutulmuştur. İlk beş şişirme-söndürme döngüsü göz ardı edilmiş ve ek olarak 10–15 döngü kaydedilmiştir. En az beş teknik olarak geçerli okumanın varyasyon katsayısının ≤10% olması durumunda oturum kabul edilmiştir. Hayvan düzeyindeki kan basıncı değeri, geçerli okumaların ortalaması olarak hesaplanmıştır. Bu kriter karşılanmadığında, hayvan 10 dk dinlendirilmiş ve bir döngü seti tekrarlanmıştır. Kriter hâlâ karşılanmamışsa, oturum ertesi gün tekrarlanmış ve tekil okumalar seçilerek çıkarılmak yerine orijinal oturum eksik olarak kaydedilmiştir. Kuyruk manşonu ölçümleri, kan basıncının aralıklı tahminlerini sağlamış olup sürekli telemetri sağlamamıştır.
ELISA
Hücre kültürü süpernatantları, PVN homojenat süpernatantları ve plazma; analiz edilmek istenen maddeye ve türe uygun assay kitleri (fare TNF-α, fare IL-1β, fare IL-6, sıçan TNF-α, sıçan IL-1β, Ang-(1-7) ve norepinefrin) kullanılarak işlenmiştir. Hücre süpernatantları, 4 °C'de 10 dakika boyunca 1.000 × g merkezkaç kuvvetinde berraklaştırılmıştır. PVN dokusu, proteaz inhibitörleri içeren buz soğukluğundaki PBS içinde 1:9 (a/h) oranında homojenize edilmiş ve 4 °C'de 15 dakika boyunca 12.000 × g merkezkaç kuvvetinde santrifüj edilmiştir. Plazma, buz üzerinde yalnızca bir kez çözdürülmüştür. Reaktifler 30 dakika boyunca oda sıcaklığına getirilmiştir. Standartlardan ve örneklerden 100 µL hacminde miktar, teknik dublike olarak eklenmiş ve 37 °C'de 2 saat boyunca inkübe edilmiş, ardından 300 µL yıkama tamponu ile beş kez yıkanmıştır. Sonrasında, 100 µL biyotinillenmiş saptama antikoru eklenmiş ve 37 °C'de 1 saat boyunca inkübe edilmiştir. Plakalar beş kez yıkanmış, ardından 100 µL horseradish-peroxidase konjugatı eklenmiş ve 37 °C'de 30 dakika boyunca inkübe edilmiştir. Bir başka yıkama adımının ardından 90 µL TMB substratı eklenmiş ve plakalar karanlıkta 15 dakika boyunca geliştirilmiştir. Ardından 50 µL durdurma çözeltisi eklenmiş ve absorbans, bir mikroplaka okuyucu kullanılarak 5 dakika içinde 450 nm'de ölçülmüştür. Konsantrasyonlar, dört parametreli lojistik standart eğrisi kullanılarak hesaplanmıştır. Varyasyon katsayısının ≤%15 olduğu dublike ölçümler kabul edilmiştir; kalibre edilen aralığın dışındaki örnekler dilüe edilerek yeniden analiz edilmiştir.
Kantitatif Gerçek Zamanlı PCR
Toplam RNA, TRIzol reaktifi kullanılarak hücrelerden veya PVN dokusundan ekstrakte edildi. RNA saflığı A260/A280 oranıyla değerlendirildi ve Evo M-MLV ters transkripsiyon premiksi ile cDNA sentezi için 1 µg RNA kullanıldı. Her 20 µL qPCR reaksiyonu; 10 µL 2× SYBR Green master mix, her biri 10 µmol/L konsantrasyonda 0,4 µL ileri ve geri primer, 2 µL dilüe edilmiş cDNA ve 7,2 µL nükleaz içermeyen su içeriyordu. Reaksiyonlar, bir gerçek zamanlı PCR deteksiyon sisteminde teknik olarak üç tekrar şeklinde gerçekleştirildi. Döngü koşulları; 30 s boyunca 95 °C ve ardından 5 s boyunca 95 °C ile 30 s boyunca 60 °C şeklinde 40 döngü olarak uygulandı. Sonrasında 65 °C'den 95 °C'ye 0,5 °C artışlarla bir eritme eğrisi oluşturuldu. Kalıp içermeyen (no-template) ve ters transkripsiyon içermeyen (no-reverse-transcription) kontroller dahil edildi. Bir analiz, yalnızca tek bir eritme piki ve %90–110 arasında bir standart eğri verimliliği gözlemlendiğinde kabul edildi. Göreli gen ekspresyonu, referans gen olarak Gapdh kullanılarak 2⁻ΔΔCt yöntemi ile hesaplandı. Çalışmada kullanılan primer dizileri Tablo 1'de listelenmiştir.
Western blot
Toplam protein, proteaz ve fosfataz inhibitörleri içeren buz soğukluğundaki RIPA tamponu kullanılarak hücrelerden veya PVN dokusundan ekstre edildi. Lizatlar 4 °C'de 15 dakika boyunca 12,000 × g hızda santrifüj edilerek berraklaştırıldı ve protein konsantrasyonu BCA testi ile belirlendi. Hedef proteinin moleküler ağırlığına göre seçilen %8–12'lik bir SDS-poliakrilamid jelin her kuyucuğuna toplam 30 µg protein yüklendi ve buz üzerinde 300 mA akımda 90 dakika boyunca 0,45 µm PVDF membrana aktarıldı. Membranlar, fosfoproteinler için %5 sığır serum albümininde veya diğer hedefler için %5 yağsız sütte, oda sıcaklığında 1 saat boyunca bloke edildi. Toplam CREB antikoru da dahil olmak üzere primer antikorlar, Materyal Tablosu'nda belirtilen dilüsyonlarda 4 °C'de gece boyunca inkübe edildi. Membranlar TBST ile 10 dakika boyunca üç kez yıkandı ve ardından oda sıcaklığında 1 saat boyunca uygun yaban turpu peroksidaz konjuge ikincil antikor (1:5.000) ile inkübe edilip tekrar yıkandı. Bantlar, doyurulmamış pozlamalar kullanılarak geliştirilmiş kemilüminesans ile tespit edildi. Bant yoğunluğu ImageJ kullanılarak kantifiye edildi. Fosfoproteinler ilgili toplam proteine göre normalize edilirken, diğer hedef proteinler GAPDH'ye göre normalize edildi.
İmmünofloresan boyama
PVN üzerinden, bregma ile ilişkili olarak yaklaşık −1.3 ile −2.1 mm arasından koronal dondurulmuş kesitler (20 µm) hazırlandı. Sıçrat başına 120 µm aralıklarla üç anatomik olarak eşleşmiş kesit seçildi. Kesitler oda sıcaklığında 20 dakika boyunca dengeye getirildi, üç kez PBS ile yıkandı, %0.3 Triton X-100 ve %5 keçi serumu ile 1 saat boyunca bloklandı ve permeabilize edildi. Kesitler, Iba-1 veya c-Fos primer antikoru ile 4 °C'de gece boyunca inkübe edildi, yıkandı ve uygun floresan sekonder antikor ile oda sıcaklığında karanlıkta 1 saat boyunca inkübe edildi. Çekirdekler 10 dakika boyunca DAPI ile karşıt boyandı. Bilateral PVN görüntüleri, ters floresan mikroskobu kullanılarak, her bir marker için aynı pozlama ve kazanç ayarları korunarak 200× büyütmede alındı. Kodlanmış görüntülere önceden tanımlanmış bir ImageJ eşiği uygulandı ve Iba-1-pozitif alan veya c-Fos-pozitif çekirdekler nicelleştirildi. Üç kesitten elde edilen ölçümler, hayvan başına tek bir değer elde etmek için ortalandı.
Güvenlik ve atık bertarafı
Metanol, etanol, paraformaldehit, DCFH-DA, elektroforez reaktifleri ve hayvan dokuları, kurumsal kimyasal ve biyogüvenlik prosedürlerine uygun olarak kullanılmıştır. Uçucu çözücüler ve paraformaldehit, sertifikalı bir kimyasal çeker ocak içerisinde kullanılmış ve uygun kişisel koruyucu donanımlar giyilmiştir. Halojen içermeyen organik çözücü atıkları ve formaldehit içeren atıklar ayrıştırılmış, biyolojik atıklar dekontamine edilmiş, kesici-delici aletler ve hayvan leşleri onaylanmış kurumsal yollarla imha edilmiştir. Kullanım öncesinde yerel atık kategorileri ve acil durum prosedürleri teyit edilmiştir.
İstatistiksel analiz
Veriler ortalama ± standart sapma olarak sunulmuş ve istatistiksel analiz ile grafik yazılımları kullanılarak analiz edilmiştir. Bağımsız kültür hazırlığı veya hayvan, biyolojik deneysel birim olarak kullanılmış; teknik kuyucuklar, alanlar veya tekrarlanan ölçümler, istatistiksel çıkarım öncesinde her bir birim içinde ortalamaları alınmıştır. Parametrik analizler öncesinde dağılım varsayımları ve varyans modelleri değerlendirilmiştir. Çok gruplu uç nokta veri setleri, tek yönlü varyans analizi ve ardından Tukey'nin çoklukla düzeltilmiş karşılaştırmaları kullanılarak analiz edilmiştir. Boylamsal sistolik kan basıncı, ortalama ± standart sapma olarak tanımlayıcı şekilde sunulmuş ve uç nokta kan basıncı sonuçları, Tukey düzeltmeli tek yönlü varyans analizi kullanılarak analiz edilmiştir. Düzeltilmiş p değerleri, ortalama farklar ve %95 güven aralıkları raporlanmıştır. İki yönlü p < 0.05 istatistiksel olarak anlamlı kabul edilmiş; tüm dışlamalar ve eksik değerler raporlanmıştır.
Sonuçlar
Hedeflenmiş HPLC ile miktarı belirlenmiş SJBE, Ang II kaynaklı mikroglial inflamasyonu inhibe eder
Etanol reflü ekstraksiyonu, başlangıç materyalinin %25,5 ± 0,7'si oranında SJBE tozu sağlamıştır (Şekil 1A). Hedefli HPLC analizi ile rutin ve kuersetin miktarları sırasıyla 276,1 mg/g ± 9,2 mg/g ve 12,5 mg/g ± 0,9 mg/g olarak belirlenmiş (Şekil 1B), böylece biyolojik deneyler boyunca kullanılan SJBE preparatının kantitatif marker karakterizasyonu yapılmıştır.
SJBE'nin 200 µg/mL konsantrasyonlara kadar BV-2 hücre canlılığı üzerinde saptanabilir bir etkisi görülmezken, 400 µg/mL konsantrasyonda canlılıkta anlamlı bir azalma gözlemlenmiştir (Şekil 1C). Bu bulgulara dayanarak, sonraki mekanistik deneyler için 100 µg/mL konsantrasyon seçilmiştir. Ang II, BV-2 hücrelerinden TNF-α ve IL-1β salınımını belirgin şekilde artırmış, SJBE ise test edilen non-sitotoksik konsantrasyon aralığında her iki inflamatuar sitokini de azaltmıştır (Şekil 1D,E); bu durum, Ang II stimülasyonu altında konsantrasyona bağlı bir anti-inflamatuar etkiye işaret etmektedir.
SJBE, daha yüksek ACE2/MasR belirteçleri ve daha düşük NF-κB sinyali ile oksidatif stres ile ilişkilidir
Ang II stimülasyonu, hem protein hem de mRNA düzeylerinde ACE2 ve MasR ekspresyonunu azaltmış ve NF-κB p65 fosforilasyonunda artışla birlikte seyretmiştir. SJBE tedavisi bu değişiklikleri tersine çevirerek, p65 fosforilasyonunu azaltırken ACE2 ve MasR ekspresyonunu artırmıştır (Şekil 2A–E).
Bu moleküler değişikliklerle uyumlu olarak, SJBE, Ang II ile stimüle edilmiş kültür süpernatantlarındaki TNF-α konsantrasyonlarını 135 pg/mL ± 12 pg/mL'den 55 pg/mL ± 6 pg/mL'ye ve IL-1β konsantrasyonlarını 102 pg/mL ± 10 pg/mL'den 42 pg/mL ± 5 pg/mL'ye düşürmüştür. ACE2 inhibitörü MLN-4760 eklenmesi bu etkileri önemli ölçüde hafifletmiş; TNF-α ve IL-1β değerleri sırasıyla 125 pg/mL ± 11 pg/mL ve 95 pg/mL ± 9 pg/mL'ye yükselmiştir. Rutin tedavisi, tam ekstrakt ile gözlemlenen anti-inflamatuar yanıtın bir kısmını yeniden ortaya çıkarmıştır (Şekil 2F).
SJBE ayrıca, Ang II stimülasyonu sonrası hücre içi DCFH-DA floresansını belirgin şekilde azaltarak, hücre içi reaktif oksijen türleri birikiminin daha düşük olduğunu göstermiştir. Bu azalma, MLN-4760 tarafından hafifletilmiştir (Şekil 2G,H). Birlikte değerlendirildiğinde, bu bulgular Ang II ile stimüle edilmiş BV-2 hücrelerinde SJBE'nin anti-enflamatuar ve antioksidan etkilerine ACE2/MasR sinyalizasyonunun restorasyonunun eşlik ettiğini ve bu etkilerin ACE2'nin farmakolojik inhibisyonuna karşı duyarlı olduğunu göstermektedir.
SJBE, mikroglialardan hipotalamik nöronlara olan inflamatuar transferi sınırlar
SJBE'nin antiinflamatuar etkilerinin mikroglia-nöron iletişimi üzerindeki etkilerini incelemek için, BV-2 hücreleri ve mHypoA-2/10 hipotalamik nöronları temassız bir Transwell sisteminde kültüre edilmiştir. Ang II stimülasyonu, ko-kültür sistemindeki TNF-α ve IL-1β konsantrasyonlarını artırmış; buna karşılık SJBE, TNF-α seviyelerini 150 ± 15 pg/mL'den 65 ± 8 pg/mL'ye ve IL-1β seviyelerini 110 ± 12 pg/mL'den 48 ± 6 pg/mL'ye düşürmüştür (Şekil 3A). Ang II ayrıca Ace2 ve Mas1 ekspresyonunu azaltmış olup, her ikisi de SJBE tedavisi sonrası kontrol seviyelerine geri dönmüştür (Şekil 3B).
Alt haznede kültüre edilen hipotalamik nöronlarda paralel değişiklikler gözlemlenmiştir. Ang II ile stimüle edilmiş ko-kültür ortamına maruz kalma, c-Fos ve COX-2 ekspresyonunu artırmış, Avp ve Oxtr ekspresyonunu ise değiştirmiş; buna karşın SJBE bu yanıtları hafifletmiştir (Şekil 3C–G). Koruyucu patern MLN-4760 tarafından zayıflatılmış, bu durum ACE2 aktivitesini ko-kültür sisteminde gözlemlenen etkilerle daha da ilişkilendirmiştir.
Bu bulgular, SJBE'nin Ang II stimülasyonu altında oluşan inflamatuar ortamı baskıladığını ve bunun Transwell modelinde downstream hipotalamik nöronal yanıtların azalmış aktivasyonu ile beraber seyrettiğini göstermektedir.
SJBE, kombine yüksek sodyum/Ang II stresi altında Ang-(1-7) sinyal yoluyla ilişkilidir ve nöronal hasarı azaltır
Ang II maruziyeti, ko-kültür süpernatantındaki Ang-(1-7) konsantrasyonlarını azaltmış ve nöronal phospho-CREB/CREB oranını artırmıştır. SJBE tedavisi, Ang-(1-7) düzeylerini artırmış ve CREB fosforilasyonunu kontrol seviyelerine doğru düşürmüştür (Şekil 4A–C); bu durum, önceki deneylerde gözlemlenen ACE2/Ang-(1-7)/MasR ile ilişkili sinyalizasyon profilinin geri kazanımı ile tutarlıdır.
Kombine 30 mmol/L NaCl ve Ang II stimülasyonu altında, hipotalamik nöronlar artmış Avp ekspresyonu ve daha yüksek oranda TUNEL-pozitif hücre sergilemiştir. SJBE her iki yanıtı da anlamlı şekilde azaltmış (Şekil 4D–F), bu durum kombine zorlanma altında nöronal stres ve hasarın azaldığını göstermiştir. TUNEL analizi için her bir değer bağımsız olarak hazırlanmış bir ko-kültürü temsil etmekte olup, istatistiksel analizden önce her biyolojik replika içinde üç mikroskopik alanın ortalaması alınmıştır (grup başına n = 5).
SJBE, L-NAME ile tedavi edilen sıçanlarda kuyruk manşeti kan basıncını düşürür ve daha yüksek PVN ACE2/Ang-(1-7)/MasR markerları ile ilişkilidir
Günlük L-NAME uygulaması, model indüksiyonu sırasında sistolik kan basıncında progresif bir artışa neden olmuştur. Hipertansiyonun yerleşmesini takiben, SJBE tedavisi sonraki 6 haftalık müdahale süreci boyunca haftalık kuyruk manşeti kan basıncını düşürmüş olup, en belirgin yanıt yüksek doz grubunda gözlemlenmiştir (Şekil 5A).
Çalışma sonunda, sistolik kan basıncı L-NAME model grubunda 165 ± 8 mmHg iken, kontrol sıçanlarında 115 mmHg ± 5 mmHg olarak belirlenmiştir. Yüksek doz SJBE, sistolik kan basıncını 130 mmHg ± 6 mmHg değerine düşürmüştür. Yüksek doz SJBE tedavisi sonrası diyastolik kan basıncı 110 mmHg ± 6 mmHg'den 85 mmHg ± 4 mmHg'ye, ortalama arter basıncı ise 128 mmHg ± 7 mmHg'den 100 mmHg ± 5 mmHg'ye gerilemiştir (model grubuna kıyasla tüm düzeltilmiş p < 0.0001; Şekil 5B). Bu bulgular, müdahale süresince SJBE'ye karşı sürdürülen bir antihipertansif yanıt olduğunu göstermektedir.
PVN dokusunun analizi paralel moleküler değişiklikleri ortaya çıkarmıştır. L-NAME uygulaması, ACE2 ve MasR protein ekspresyonunun yanı sıra Ang-(1-7) konsantrasyonlarını azaltırken, SJBE ise her üç belirteci de doz yanıtlı bir şekilde geri kazandırmıştır. Yüksek doz grubunda, model grubuyla karşılaştırıldığında ACE2 relatif ekspresyonu 0,40 ± 0,07'den 1,50 ± 0,18 kata, MasR 0,45 ± 0,08'den 1,35 ± 0,16 kata ve Ang-(1-7) 9 pg/mg ± 2 pg/mg proteinden 32 pg/mg ± 5 pg/mg proteine yükselmiştir (Şekil 5C–E). Böylece, SJBE'nin kan basıncını düşürücü etkisi, PVN içindeki ACE2/Ang-(1-7)/MasR ile ilişkili moleküler profilin yeniden kazanımıyla birlikte seyretmiştir.
SJBE, daha düşük PVN inflamatuar aktivasyonu ve sistemik sempatik çıktı belirteçleri ile ilişkilidir
L-NAME ile indüklenen hipertansiyona, PVN içinde belirgin bir inflamatuar aktivasyon eşlik etmiştir. Model sıçanlarda Tnf ve Il1b mRNA seviyeleri yükselmişken, yüksek doz SJBE, Tnf ekspresyonunu 4,5 ± 0,5 kattan 1,8 ± 0,2 kata ve Il1b ekspresyonunu 3,8 ± 0,4 kattan 1,6 ± 0,18 kata düşürmüştür (Şekil 6A).
İmmünofloresan analizi uyumlu hücresel değişiklikler göstermiştir. Mikroglial aktivasyonun göstergesi olan Iba-1 boyanması, L-NAME ile tedavi edilen sıçanların PVN bölgesinde artmış, SJBE uygulaması sonrası ise azalmıştır. c-Fos boyanması benzer bir örüntü sergilemiş ve SJBE tedavisi sonrası nöronal aktivasyon, tedavi edilmemiş model grubuna göre daha düşük çıkmıştır (Şekil 6B–D).
Bu merkezi inflamatuar değişikliklere, dolaşımdaki inflamatuar ve sempatik belirteçlerdeki iyileşmeler eşlik etmiştir. Model sıçanlarda plazma TNF-α ve IL-1β konsantrasyonları yüksek bulunmuş ve SJBE tedavisi sonrasında önemli ölçüde azalmıştır. Yüksek doz grubunda, TNF-α 45 pg/mL ± 6 pg/mL'den 20 pg/mL ± 3 pg/mL'ye ve IL-1β 35 pg/mL ± 5 pg/mL'den 15 pg/mL ± 3 pg/mL'ye düşmüştür (Şekil 6E). Plazma norepinefrin seviyeleri de benzer şekilde 400 pg/mL ± 45 pg/mL'den 180 pg/mL ± 25 pg/mL'ye gerilemiştir (Şekil 6F).
Toplamda, bu in vivo bulgular, SJBE tedavisinin L-NAME ile tedavi edilen sıçanlarda kan basıncını; PVN ACE2/Ang-(1-7)/MasR ile ilişkili belirteçlerin restorasyonu, PVN inflamatuar aktivasyonunun hafiflemesi ve dolaşımdaki inflamatuar sitokinler ile norepinefrindeki azalmalarla paralel olarak düşürdüğünü göstermektedir.
VERİ KULLANILABİLİRLİĞİ:
Şekillerin temelini oluşturan sayısal kaynak veriler ve ilgili istatistiksel çıktılar Ek Dosya 1'de sunulmuştur.
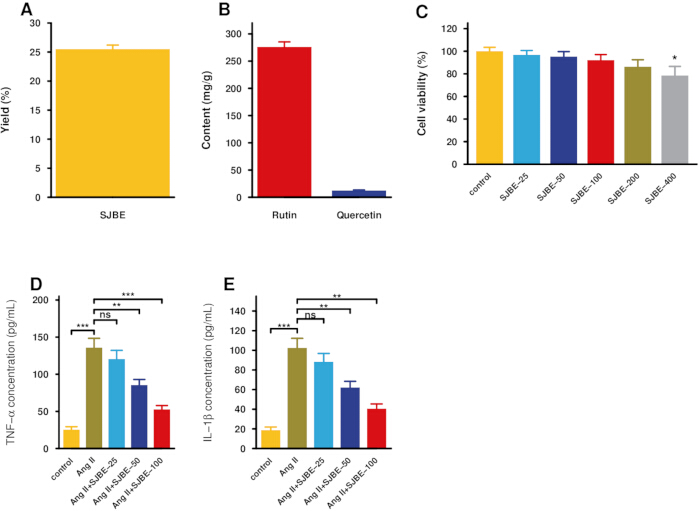
Şekil 1: Hedefli HPLC kantifikasyonu ve başlangıç BV-2 deneyleri. (A) Ekstraksiyon verimi. (B) SJBE'de hedefli HPLC ile kantifiye edilen rutin ve kuersetin içerikleri. (C) SJBE'ye 24 h maruziyet sonrası BV-2 canlılığı. (D,E) Ang II stimülasyonu uygulanmış BV-2 süpernatantlarındaki TNF-α ve IL-1β. Veriler ortalama ± SD olarak sunulmuştur; mevcut kantitatif paneller için n = 3 bağımsız deney yapılmıştır. Tukey düzeltmeli karşılaştırmalarla tek yönlü ANOVA kullanılmıştır. Kısaltmalar: ns, anlamlı değil; *p < 0.05, **p < 0.01, *** p < 0.001, **** p < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
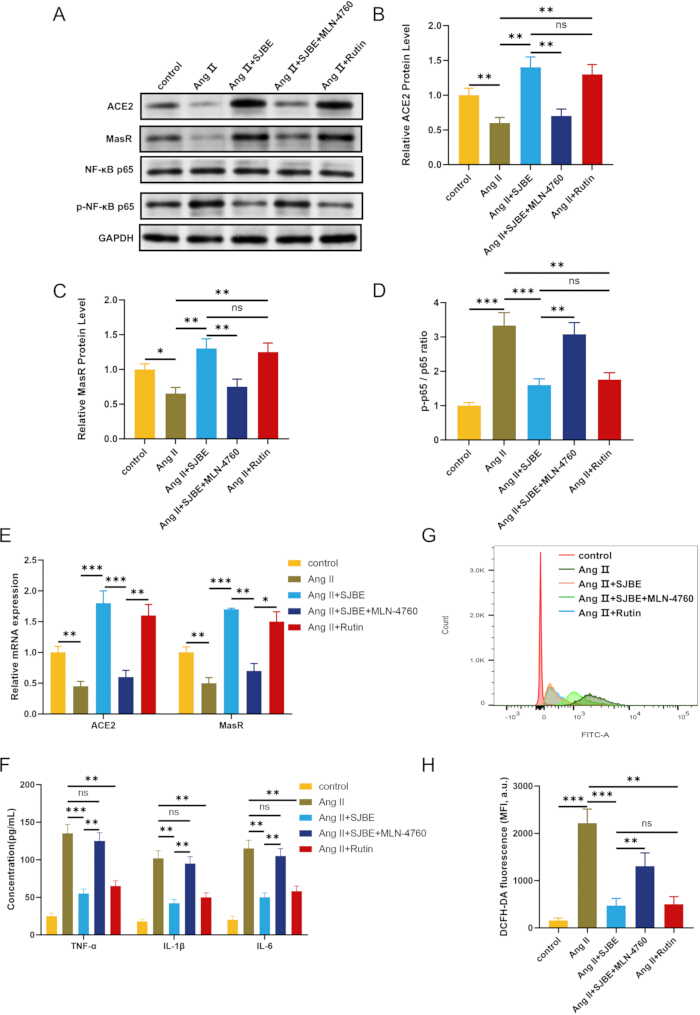
Şekil 2: SJBE, BV-2 hücrelerinde daha yüksek ACE2/MasR belirteçleri ve daha düşük NF-κB sinyalizasyonu ile oksidatif stresle ilişkilidir. (A–D) ACE2, MasR, phospho-p65 ve toplam p65 immunoblotleri ve nicelendirmesi. (E) Ace2 ve Mas1 mRNA. (F) TNF-α, IL-1β ve IL-6. (G,H) ROS akış sitometrisi çıktısı ve floresan nicelendirmesi. Veriler ortalama ± SD; n = 3 bağımsız deneydir. Tukey düzeltmeli karşılaştırmalar içeren tek yönlü ANOVA kullanılmıştır. ns, anlamlı değil; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
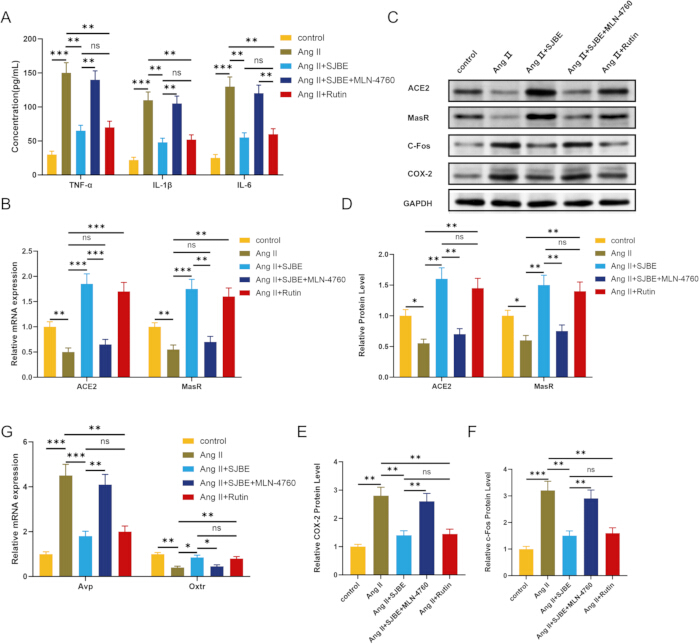
Şekil 3: SJBE, bir BV-2/mHypoA-2/10 çözünür faktör ko-kültür modelinde enflamatuar sinyali sınırlar. (A) Ko-kültür süpernatantındaki sitokinler. (B) Ace2 ve Mas1 mRNA düzeyleri. (C–F) ACE2, MasR, c-Fos ve COX-2 immunoblots analizleri ve kantifikasyonları. (G) Alt bölme nöronlarında Avp ve Oxtr ekspresyonu. Veriler ortalama ± SD; n = 3 bağımsız deneydir. Tukey düzeltmeli karşılaştırmalar içeren tek yönlü ANOVA kullanılmıştır. ns, anlamlı değil; *p < 0.05, **p < 0.01, ***p <0.001, ****p < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
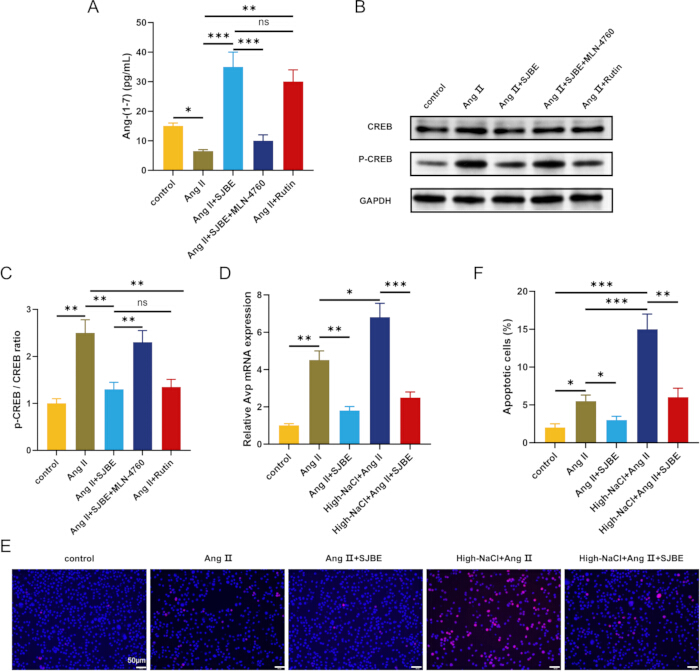
Şekil 4: SJBE, Ang-(1-7) sinyalizasyonu ve daha düşük strese bağlı nöronal hasar ile ilişkilidir. (A) Ko-kültür süpernatantındaki Ang-(1-7). (B,C) Alt bölme nöronlarındaki fosfo-CREB ve toplam CREB. (D) Kombine NaCl/Ang II stres koşulu altındaki Avp. (E,F) Temsili TUNEL görüntüleri ve nicelleştirme; ölçek çubuğu, 50 µm. Veriler ortalama ± SD olarak verilmiştir; A, C ve D panelleri için n = 3 bağımsız deney; F paneli için hazırlık başına üç alanın ortalaması alınarak n = 5 bağımsız ko-kültür hazırlığı kullanılmıştır. Tukey-düzeltmeli karşılaştırmalarla tek yönlü ANOVA kullanılmıştır. ns, anlamlı değil; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
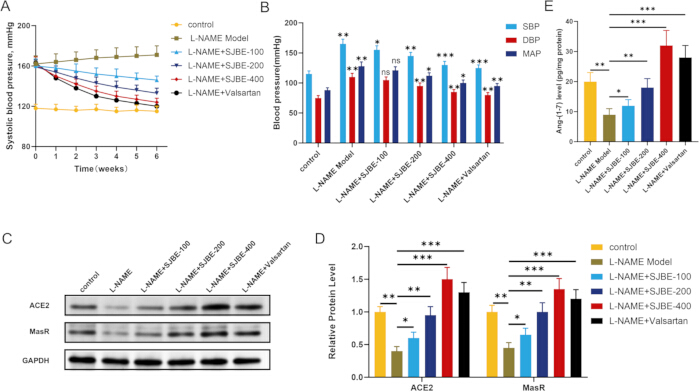
Şekil 5: SJBE, L-NAME ile tedavi edilen sıçanlarda kuyruk manşeti kan basıncını düşürür ve daha yüksek PVN ACE2/Ang-(1-7)/MasR belirteçleri ile ilişkilidir. (A) Boylamsal sistolik kan basıncı. (B) Bitiş noktası sistolik, diyastolik ve ortalama arter basıncı. (C,D) PVN dokusunda ACE2 ve MasR immunoblotları ve kantifikasyonu. (E) PVN homojenatlarında Ang-(1-7). Veriler ortalama ± SD; n = 6 sıçan/grup. Boylamsal SBP tanımlayıcı olarak sunulmuştur; bitiş noktası sonuçları için Tukey ayarlı karşılaştırmalarla tek yönlü ANOVA kullanılmıştır. ns, anlamlı değil; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
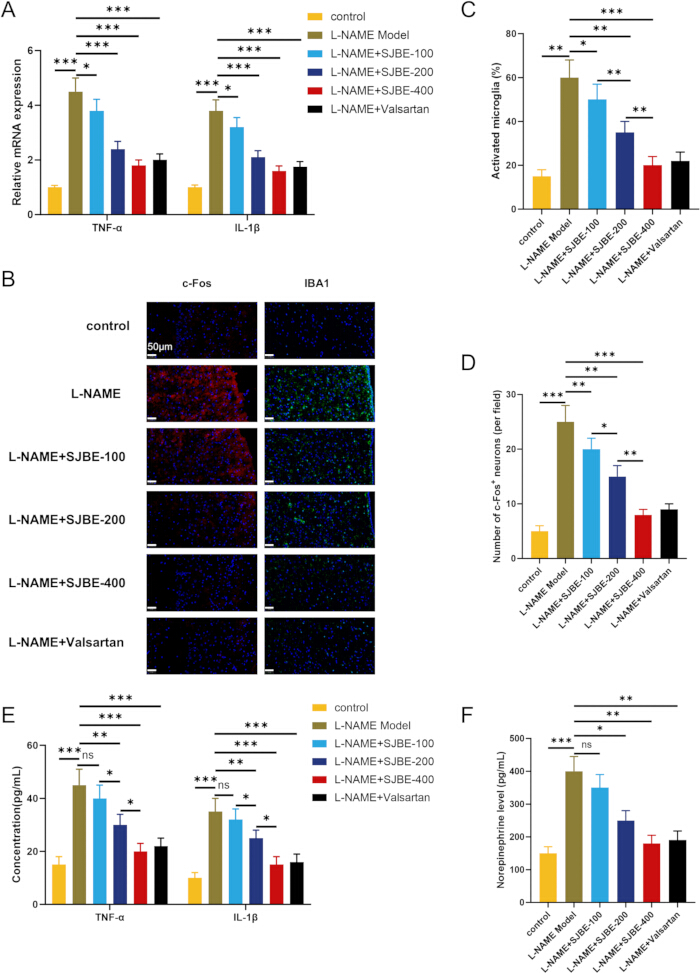
Şekil 6: SJBE, L-NAME ile tedavi edilen farelerde daha düşük PVN inflamatuar aktivasyonu ve sistemik sempatik çıktı belirteçleri ile ilişkilidir. (A) PVN dokusunda Tnf ve Il1b mRNA. (B–D) Iba-1 ve c-Fos immünofloresansı ve kantifikasyonu; ölçek çubukları, 50 µm. (E) Plazma TNF-α ve IL-1β. (F) Plazma norepinefrin. Veriler ortalama ± SD; n = 6 fare/grup. Tukey düzeltmeli karşılaştırmalarla tek yönlü ANOVA kullanılmıştır. *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Gen | İleri primer (5'-3') | Ters primer (5'-3') |
| Gapdh | CACCCACTCCTCCACCTTTGAC | GTCCACCACCCTGTTGCTGTAG |
| Tnfα | CCTGCTGCACTTTGGAGTGA | GCTTGAGGGTTTGCTACAACA |
| Il1b | CAGTGAGGAGAATGACCTGTTC | CGAGATGCTGCTGTGAGATT |
| Ace2 | TCCATTGGTCTTCTGCCATCCG | AGACCATCCACCTCCACTTCTC |
| Mas1 | TCCACCATCAATAGCAGCG | AAGCCACCCACATTCAGGC |
| Avp | TCGCCATGATGCTCAACACTACGC | ACACTGTCTCAGCTCCATGTCGGATG |
| Oxtr | GTGTCGAGTTGGACCTCGGG | CCAGGAACAGAATGAGGCACAG |
Tablo 1: Çalışmada kullanılan primer dizileri.
Ek Dosya 1: Şekillerin temelini oluşturan sayısal kaynak veriler ve ilgili istatistiksel çıktılar. Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu çalışma, hedefli HPLC ile miktarı belirlenmiş S. japonicum tomurcuk özütünün, mikroglial ve çözünür faktör ko-kültür modellerinde daha düşük inflamatuar sinyalleme ile ve L-NAME ile tedavi edilen sıçanlarda daha düşük kuyruk-manşet kan basıncı ile ilişkili olduğunu ortaya koymaktadır. Deney sistemleri genelinde, SJBE tedavisi daha yüksek ACE2/Ang-(1-7)/MasR belirteçleri, daha düşük NF-κB aktivasyonu ve oksidatif stres ile daha düşük PVN inflamatuar-aktivasyon belirteçleri ile eş zamanlı seyretmiştir. Bu yakınsayan gözlemler bir nöroimmün hipotezi desteklemektedir ancak merkezi yolun antihipertansif etkiye aracılık ettiğini kanıtlamamaktadır.
Sonuçlar, S. japonicum çiçeği bileşenlerinin ve rutinin inflamatuar sinyallemeyi ve nöroinflamasyonu azalttığına dair raporlarla8,9,22 ve kuersetinin kardiyovasküler inflamatuar tonu ve mikroglial redoks sinyallemeyi modüle ettiğine dair kanıtlarla12,13 tutarlıdır. Mevcut çalışma, bu gözlemleri bütün bir botanik ekstrakt kullanarak hipotalamik nöroimmün modellere genişletmektedir. MLN-4760 koruyucu yanıtı sadece in vitro zayıflattığı için, ACE2'nin in vivo kan basıncı etkisinin yerleşik mediyatöründen ziyade, hücresel anti-inflamatuar yanıta fonksiyonel bir katkıda bulunan unsur olarak yorumlanması daha uygundur.
PVN bulguları, hücresel gözlemleri bir kardiyovasküler kontrol bölgesi kapsamına yerleştirmektedir. Önceki çalışmalar, mikroglia ve inflamatuar sitokinlerin nörojenik hipertansiyona ve sempatik eksitasyona katkıda bulunduğunu göstermektedir23,24. PVN içindeki Ang-(1-7) sinyali sempatik çıkışı düzenleyebilirken, Ang II ise AT1/TLR4-bağımlı mikroglial redoks stresini tetikleyebilir20,21. Buna göre, SJBE tedavisi sonrası Iba-1, c-Fos, inflamatuar sitokinler ve plazma norepinefrin düzeylerindeki azalmalar, daha düşük PVN inflamatuar aktivasyonu ile tutarlıdır; ancak veriler, bu değişikliklerin kan basıncındaki düşüşe neden mi olduğunu yoksa sistemik iyileşmeyi mi takip ettiğini belirlememektedir.
Ang II ve L-NAME modelleri, özdeş hastalık mekanizmaları yerine birbirini tamamlayan stres ortamları sağlar. Ang II stimülasyonu, renin-anjiyotensin kaynaklı mikroglial inflamasyonu indüklerken; L-NAME, vasküler disfonksiyon ve oksidatif stres ile seyreden nitrik oksit eksikliği hipertansiyonunu modeller25,26. Diğer modeller de sempatik regülasyonda PVN mikroglial aktivasyonuna işaret etmektedir14,27, ancak mevcut L-NAME çalışması PVN kaynaklı nörojenik hipertansiyon için spesifik değildir. Yüksek sodyumlu ko-kültür koşulu, izo-osmotik kontrolü olmayan in vitro bir nöronal stres zorlamasıdır ve in vivo bir tuz hipertansiyon modeli olarak yorumlanmamalıdır.
Tekrarlanabilir bir uygulama için en kritik adımlar; botanik kaynak dokümantasyonu, tutarlı ekstraksiyon ve saklama, standardize edilmiş hücre yoğunluğu ve işlem zamanlaması, doğru Transwell bölme ataması, kuyruk manşeti alıştırması ve ısıtma, hassas PVN örneklemesi ve körlenmiş son nokta nicelendirmesidir. Değişken ekstraksiyon verimi; materyal neminin, çözücü oranının, reflüks koşullarının, filtrasyonun ve liyofilizasyonun kontrol edilmesini gerektirmelidir; HPLC tutulum kaymaları ise standart hazırlama, mobil faz, akış hızı, sıcaklık, kolon dengeleme ve sistem uygunluğunun kontrol edilmesini gerektirmelidir. Tutarsız ko-kültür veya kuyruk manşeti sonuçları, ölçümler seçici olarak hariç tutulmak yerine, insert bütünlüğü ve işlem yerleşimi kontrol edilerek veya standardize alıştırma işlemi tekrarlanarak ele alınmalıdır. Bu protokolün kapsamı dışındaki sorular için kromatografik parmak izi veya LC-MS/MS, primer veya hücre seçici ko-kültür tasarımları, telemetri, beyin/plazma farmakokinetiği ve merkezi ACE2/MasR fonksiyon kaybı deneyleri uygun alternatiflerdir. Nöron-mikroçevre yeniden şekillenmesi ve görüntüleme/yapay zeka entegrasyonu üzerine gelişen disiplinler arası çalışmalar, karmaşık biyolojik sistemleri sorgulamak için daha geniş metodolojik yönelimleri örneklendirmektedir28,29.
Uygulama kapsamını birkaç sınırlama tanımlamaktadır. MLN-4760 yalnızca in vitro fonksiyonel kanıt sağlamıştır; herhangi bir in vivo ACE2/MasR blokajı veya plazma, beyin veya PVN maruziyet ölçümü gerçekleştirilmemiştir. Bu nedenle 100 µg/mL konsantrasyonu, in vivo eşdeğeri bir maruziyetten ziyade, sitotoksik olmayan bir in vitro çalışma konsantrasyonudur. Transwell tasarımı mikroglia-spesifik etkini kanıtlayamaz ve prospektif olarak güçlendirilmemiş küçük hayvan kohortu hassasiyeti kısıtlar. Kuyruk manşeti ölçümleri aralıklıdır ve kısıtlamaya duyarlıdır. Son olarak, hedeflenmiş rutin/kuersetin miktar tayini bir kimyasal parmak izi, tam analitik doğrulama, bileşen ataması veya bağımsız seri tutarlılığı sağlamaz. Bu sınırlar dahilinde protokol, kesin bir nedensel veya translasyonel iddiadan ziyade SJBE, nöroinflamatuar sinyalizasyon ve kan basıncı regülasyonuna ilişkin hipotez oluşturulmasını desteklemektedir.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Teşekkürler
Yazarlar, katılımcı laboratuvarlarla ilgili kurumsal ve teknik destekler için teşekkür ederler.
Finansman:
Bu çalışma, Çin Ulusal Doğa Bilimleri Vakfı (No. 82600861); Shanxi Eyaleti Temel Araştırma Programı Gençlik Projesi (No'lar 202203021212491, 202303021222205); Shanxi Eyaleti Temel Araştırma Programı Genel Projesi (No. 202203021221210) ve Shanxi Datong Üniversitesi Doktora Araştırma Başlangıç Projesi (No. 2018-B-36) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| 0.4 µm Transwell insertleri | Corning Incorporated | 3413 | BV-2/mHypoA-2/10 temassız ko-kültürü için 24 kuyucuklu polikarbonat membran inserti |
| ACE2 antikoru | Cell Signaling Technology | 92485; RRID: AB_3741093 | ACE2 (E5O6J) tavşan mAb; WB 1:1.000; IHC/IF 1:100–1:200 |
| Alexa Fluor 488 anti-tavşan IgG | Cell Signaling Technology | 4412; RRID: AB_1904025 | İmmünofloresan sekonder antikor; 1:500 |
| Alexa Fluor 594 anti-tavşan IgG | Cell Signaling Technology | 8889; RRID: AB_2716249 | İmmünofloresan sekonder antikor; 1:500 |
| Anjiyotensin II | Sigma-Aldrich | A9525 | Sentetik Ang II peptidi; mikroglial stimülasyon |
| Anjiyotensin-(1-7) analiz kiti | Cloud-Clone Corp. | CES085Mi | Ang-(1-7) kantifikasyonu |
| BCA protein analiz kiti | Beyotime Biotechnology | P0012 | Protein kantifikasyonu |
| BV-2 hücreleri | Procell Life Science & Technology Co., Ltd. | CL-0493; RRID: CVCL_0182 | Fare mikroglial hücre hattı; pasaj 3–20 |
| C18 HPLC kolonu | Shimadzu Corporation | Shim-pack GIST C18; P/N 227-30017-08 | 250 × 4.6 mm, 5 µm; metanol–su (65:35, v/v), 1.0 mL/dk, 35 °C |
| CCK-8 reaktifi | Beyotime Biotechnology | C0038 | Hücre canlılığı analizi |
| c-Fos antikoru | Cell Signaling Technology | 2250; RRID: AB_2247211 | c-Fos (9F6) tavşan mAb; WB 1:1.000; IF 1:200 |
| COX-2 antikoru | Cell Signaling Technology | 12282; RRID: AB_2571729 | COX-2 (D5H5) tavşan mAb; WB 1:1.000; IHC/IF 1:200 |
| DCFH-DA probu | Beyotime Biotechnology | S0033S | Akış sitometrisi ile ROS tespiti |
| DMEM, yüksek glikoz | Gibco/Thermo Fisher Scientific | 11965092 | Hücre kültür ortamı |
| Evo M-MLV Ters Transkripsiyon Premix Kiti | Accurate Biotechnology | AG11706 | qPCR için cDNA sentezi |
| Fetal sığır serumu | Gibco/Thermo Fisher Scientific | 10099141 | Hücre kültürü takviyesi |
| Akış sitometresi | BD Biosciences | BD Accuri C6 Plus | ROS floresans kazanımı |
| Floresan mikroskop | Olympus/Evident Scientific | IX73 | TUNEL ve PVN görüntüleme için ters floresan mikroskop |
| GAPDH antikoru | Cell Signaling Technology | 5174; RRID: AB_10622025 | GAPDH (D16H11) tavşan mAb; WB 1:1.000–1:5.000 |
| Keçi serumu | Beyotime Biotechnology | C0265 | İmmünofloresan bloklama reaktifi |
| HPLC sistemi | Shimadzu Corporation, Kyoto, Japonya | Prominence LC-20A | Hedefli rutin/kuersetin kalite kontrol analizi |
| HRP bağlantılı anti-fare IgG | Cell Signaling Technology | 7076; RRID: AB_330924 | Western blot sekonder antikoru; 1:3.000–1:5.000 |
| HRP bağlantılı anti-tavşan IgG | Cell Signaling Technology | 7074; RRID: AB_2099233 | Western blot sekonder antikoru; 1:3.000–1:5.000 |
| Iba-1/AIF-1 antikoru | Cell Signaling Technology | 17198; RRID: AB_2820254 | Iba-1/AIF-1 (E4O4W) tavşan mAb; WB 1:1.000; IHC/IF 1:200 |
| IL-6 ELISA kiti | Beyotime Biotechnology | PY2782 | Fare IL-6 kantifikasyonu |
| L-NAME | Beyotime Biotechnology | S0006 | Nitrik oksit eksikliği hipertansiyonu için NOS inhibitörü |
| Erkek Wistar sıçanları | Beijing HFK Bioscience Co., Ltd. | Wistar; SCXK (Jing) 2019-0008 | Spesifik patojen içermeyen erkekler, 6–8 haftalık, 180–220 g |
| MasR antikoru | Alomone Labs | AAR-013; RRID: AB_2039972 | Anti-Mas reseptör antikoru; WB 1:200; IHC/IF 1:100 |
| mHypoA-2/10 hücreleri | Cedarlane Laboratories Ltd. | CLU176; RRID: CVCL_D384 | Fare hipotalamik nöronal hücre hattı; pasaj 3–20 |
| Mikroplaka okuyucu | Thermo Scientific | Multiskan FC; Kat. No. 51119000 | CCK-8 ve ELISA absorbans ölçümleri |
| MLN-4760 | Beyotime Biotechnology | SF1197 | ACE2 inhibitörü; hücre deneylerinde 10 µmol/L |
| Fare IL-1β ELISA kiti | Invitrogen/Thermo Fisher Scientific | 88-7013A-88 | Fare IL-1β kantifikasyonu |
| Fare TNF-α ELISA kiti | Beyotime Biotechnology | PT512 | Fare TNF-α kantifikasyonu |
| NF-κB p65 antikoru | Cell Signaling Technology | 8242; RRID: AB_10859369 | NF-κB p65 (D14E12) XP tavşan mAb; WB 1:1.000 |
| Noninvaziv kuyruk manşeti sistemi | Visitech Systems | BP-2000-R-4 | Sıçan kuyruk manşeti kan basıncı kazanım ve ısıtma sistemi |
| Norepinefrin analiz kiti | Cloud-Clone Corp. | HEA907Ge | Norepinefrin kantifikasyonu |
| p-CREB antikoru | Cell Signaling Technology | 9198; RRID: AB_2561044 | Fosfo-CREB (Ser133) (87G3) tavşan mAb; WB 1:1.000 |
| Penisilin–streptomisin | Gibco/Thermo Fisher Scientific | 15140122 | Hücre kültürü antibiyotik takviyesi |
| Fotodiyot dizisi detektörü | Shimadzu Corporation | SPD-M20A | 360 nm'de HPLC UV–görünür/PDA deteksiyonu |
| p-NF-κB p65 antikoru | Cell Signaling Technology | 3031; RRID: AB_330559 | Fosfo-NF-κB p65 (Ser536) antikoru; WB 1:1.000 |
| PVDF membran | Beyotime Biotechnology | FFP77 | 0.45 µm Western blot membranı |
| Kuersetin standardı | Beyotime Biotechnology | SM2147 | Kuersetin referans standardı; HPLC ile %98 saflıkta |
| Sıçan IL-1β ELISA kiti | Elabscience Biotechnology Inc. | E-HSEL-R0002 | Sıçan IL-1β kantifikasyonu |
| Sıçan TNF-α ELISA kiti | Elabscience Biotechnology Inc. | E-HSEL-R0001 | Sıçan TNF-α kantifikasyonu |
| Real-time PCR sistemi | Bio-Rad Laboratories, Inc. | CFX96 Touch; Kat. No. 1855195 | Real-time qPCR amplifikasyonu ve erime eğrisi analizi |
| RIPA lizis tamponu | Beyotime Biotechnology | P0013B | Protein ekstraksiyonu |
| Rutin standardı | Beyotime Biotechnology | SM2159 | Rutin referans standardı; HPLC ile %98 saflıkta |
| Sophorae Flos referans materyali | National Institutes for Food and Drug Control (NIFDC), Pekin, Çin | 121270; Parti No. 121270-201403 | S. japonicum çiçek tomurcuklarının doğrulanması için sertifikalı botanik referans materyali |
| Styphnolobium japonicum çiçek tomurcukları | Çalışma botanik materyali | Uygulanamaz | NIFDC Sophorae Flos referans materyaline göre doğrulanmış, kurumuş, açılmamış çiçek tomurcukları |
| Total CREB antikoru | Proteintech Group, Inc. | 12208-1-AP; RRID: AB_2245417 | Fosfo-CREB normalizasyonu için total CREB tavşan poliklonal antikoru |
| TRIzol reaktifi | Invitrogen/Thermo Fisher Scientific | 15596026 | RNA izolasyonu |
| TUNEL apoptoz tespit kiti | Beyotime Biotechnology | C1086 | Nöronal apoptoz tespiti |
| Valsartan | Sigma-Aldrich | SML0142 | AT1 reseptör antagonisti; pozitif antihipertansif kontrol |
Kaynaklar
- He X, et al. Local and traditional uses, phytochemistry, and pharmacology of Sophora japonica L.: a review. J Ethnopharmacol. 2016;187:160-182.
- Madden E, McLachlan C, Oketch-Rabah H, Calderon AI. United States Pharmacopeia comprehensive safety review of Styphnolobium japonicum flower and flower bud. Phytother Res. 2022;36(5):2061-2071.
- Shi W, et al. Bioactive flavonoids from Flos Sophorae. J Nat Med. 2017;71(3):513-22.
- Paniwnyk L, Beaufoy E, Lorimer JP, Mason TJ. The extraction of rutin from flower buds of Sophora japonica. Ultrason Sonochem. 2001;8(3):299-301.
- Xie Z, et al. Extraction and isolation of flavonoid glycosides from Flos Sophorae Immaturus using ultrasonic-assisted extraction followed by high-speed countercurrent chromatography. J Sep Sci. 2014;37(8):957-965.
- Wang G, et al. Efficient extraction of flavonoids from Flos Sophorae Immaturus by tailored and sustainable deep eutectic solvent as green extraction media. J Pharm Biomed Anal. 2019;170:285-294.
- Le NT, Nguyen TPD, Ho DV, Phung HT, Nguyen HT. A green method to extract rutin from Sophora japonica L. MethodsX. 2023;11:102479.
- Liu Y, et al. Sophora japonica flowers and their main phytochemical, rutin, regulate chemically induced murine colitis in association with targeting the NF-kappaB signaling pathway and gut microbiota. Food Chem. 2022;393:133395.
- Hao G, et al. Rutin inhibits neuroinflammation and provides neuroprotection in an experimental rat model of subarachnoid hemorrhage, possibly through suppressing the RAGE-NF-kappaB inflammatory signaling pathway. Neurochem Res. 2016;41(6):1496-1504.
- Dabeek WM, Marra MV. Dietary quercetin and kaempferol: bioavailability and potential cardiovascular-related bioactivity in humans. Nutrients. 2019;11(10):2288.
- Patel RV, et al. Therapeutic potential of quercetin as a cardiovascular agent. Eur J Med Chem. 2018;155:889-904.
- Han X, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010.
- Le K, et al. Quercetin alleviates neonatal hypoxic-ischemic brain injury by inhibiting microglia-derived oxidative stress and TLR4-mediated inflammation. Inflamm Res. 2020;69(12):1201-1213.
- Mi Y, Wu Q, Yuan W, Chen F, Du D. Role of microglia M1/M2 polarisation in the paraventricular nucleus: new insight into the development of stress-induced hypertension in rats. Auton Neurosci. 2018;213:71-80.
- Wei B, et al. Microglia in the hypothalamic paraventricular nucleus sense hemodynamic disturbance and promote sympathetic excitation in hypertension. Immunity. 2024;57(9):2030-42.e8.
- Wang M, et al. Microglia-mediated neuroinflammation: a potential target for the treatment of cardiovascular diseases. J Inflamm Res. 2022;15:3083-3094.
- Xu P, Sriramula S, Lazartigues E. ACE2/ANG-(1-7)/Mas pathway in the brain: the axis of good. Am J Physiol Regul Integr Comp Physiol. 2011;300(4):R804-817.
- Bader M. ACE2, angiotensin-(1-7), and Mas: the other side of the coin. Pflugers Arch. 2013;465(1):79-85.
- Sriramula S, Cardinale JP, Lazartigues E, Francis J. ACE2 overexpression in the paraventricular nucleus attenuates angiotensin II-induced hypertension. Cardiovasc Res. 2011;92(3):401-408.
- Silva AQ, Santos RA, Fontes MA. Blockade of endogenous angiotensin-(1-7) in the hypothalamic paraventricular nucleus reduces renal sympathetic tone. Hypertension. 2005;46(2):341-348.
- Biancardi VC, Stranahan AM, Krause EG, de Kloet AD, Stern JE. Cross talk between AT1 receptors and Toll-like receptor 4 in microglia contributes to angiotensin II-derived ROS production in the hypothalamic paraventricular nucleus. Am J Physiol Heart Circ Physiol. 2016;310(3):H404-115.
- Sun XY, et al. Rutin prevents tau pathology and neuroinflammation in a mouse model of Alzheimer’s disease. J Neuroinflammation. 2021;18(1):131.
- Shi P, et al. Brain microglial cytokines in neurogenic hypertension. Hypertension. 2010;56(2):297-303.
- Shen XZ, et al. Microglia participate in neurogenic regulation of hypertension. Hypertension. 2015;66(2):309-316.
- Simko F, et al. Effect of melatonin on the renin-angiotensin-aldosterone system in L-NAME-induced hypertension. Molecules. 2018;23(2):265.
- Selamoglu Talas Z. Propolis reduces oxidative stress in L-NAME-induced hypertension rats. Cell Biochem Funct. 2014;32(2):150-154.
- Moreira JD, et al. Inhibition of microglial activation in rats attenuates paraventricular nucleus inflammation in Gαi2 protein-dependent, salt-sensitive hypertension. Exp Physiol. 2019;104(12):1892-910.
- Wu Y, Sun R, Ren S, Zengin G, Li M. Neuronal reshaping of the tumor microenvironment in tumorigenesis and metastasis: bench to clinic. Medicine Advances. 2025;3(4):364-371.
- Xu J et al. Advancements in imaging technologies and AI integration for neurodegenerative disease management: a narrative review. Mol Imaging. 2025;24:15353508251393056.