Bu in silico çalışma, F7 promoter bölgesindeki HNF4α bağlanmasının geri kazandırılmasının, kalıtsal FVII eksikliğinde modellenmiş F7 transkripsiyonunu iyileştirip iyileştiremeyeceğini araştırmıştır. Bilgisayarlı analizler, temel düzenleyici motifleri ve güçlü gen ekspresyon korelasyonlarını tanımlamıştır. Simülasyonlar, CRISPRa hedeflemesinin F7 transkripsiyonunu normal seviyelerin yaklaşık %87'sine geri getirebileceğini öngörmüş olup bu durum deneysel doğrulamayı gerekli kılmaktadır.
Araştırma makalesi
Kalıtsal Faktör VII Eksikliğinde F7 Promotör Aktivitesinin In Silico CRISPR ile Restorasyonu
Bu makalede
Özet
Özet
Kalıtsal Faktör VII (FVII) eksikliği, azalmış F7 gen ekspresyonu ve bozulmuş koagülasyon ile ilişkilidir ve F7 transkripsiyonunu kontrol eden düzenleyici mekanizmalar henüz tam olarak karakterize edilmemiştir. Bu çalışma; transkripsiyon faktörü modülasyonu, promotör motif düzeltmesi veya CRISPR aktivasyonu (CRISPRa) aracılı epigenetik düzenleme yoluyla, F7 promotöründeki öngörülen HNF4α bağlanmasının geri kazandırılmasının, kalıtsal FVII eksikliğinde öngörülen F7 transkripsiyonunu teorik olarak artırıp artıramayacağını bilgisayar ortamında keşfetmeyi amaçlamıştır. JASPAR, FIMO ve UCSC Genome Browser veri setlerini kullanarak korunan transkripsiyon faktörü bağlanma motiflerini belirleyip F7 promotör düzenleyici manzarasını karakterize etmek için tamamen in silico bir iş akışı geliştirilmiştir. Karaciğer ekspresyon korelasyonları GTEx transkriptomik verileri kullanılarak değerlendirilirken, kromatin erişilebilirliği ve düzenleyici bağlam ENCODE ChIP-seq, ATAC-seq ve ChromHMM/Segway anotasyonları kullanılarak analiz edilmiştir. HNF4α kaybının F7 transkripsiyonu üzerindeki öngörülen etkilerini 24 saatlik bir süre boyunca simüle etmek için CellDesigner'da hepatik bir düzenleyici ağ oluşturulmuştur. Proksimal F7 promotörü içinde, üçü bilinen hastalıkla ilişkili varyantlarla örtüşen, yüksek güvenilirlikli altı HNF4α bağlanma motifi belirlenmiştir. Karaciğer ekspresyon analizleri, F7 ile HNF4A (r = 0,68) ve HNF1A (r = 0,61) arasında pozitif korelasyonlar olduğunu göstermiştir. Bilgisayarlı modelleme, HNF4α ile ilişkili düzenleyici bölgeleri hedefleyen CRISPRa'nın, modellenen koşullar altında ve öngörülen hedef özgüllüğü ile simüle edilen F7 transkripsiyonunu vahşi tip seviyelerinin yaklaşık %87'sine kadar artırabileceğini öngörmüştür. Genel olarak, bu tamamen bilgisayarlı çalışma, kalıtsal FVII eksikliğinde promotör hedefli düzenleyici stratejilere öncelik vermek için entegre bir multi-omik çerçeve sunmaktadır. Transkripsiyon faktörü motif analizi, kromatin anotasyonu, transkriptomik korelasyon, düzenleyici ağ modellemesi ve CRISPR rehber önceliklendirmesini birleşik bir iş akışında birleştiren bu çalışma, önceki tek varyantlı veya izole deneysel analizlerin ötesine geçen sistematik bir yaklaşım sağlarken deneysel olarak test edilebilir hipotezler üretmektedir.
Giriş
Faktör VII (FVII), ekstrinsik yolak üzerinden koagülasyon kaskadını başlatan, K vitaminine bağımlı bir serin proteazdır. Vasküler hasarı takiben, aktive olmuş FVII (FVIIa), trombin üretimini ve fibrin pıhtısı oluşumunu tetiklemek için doku faktörü ile kompleks oluşturur. Kromozom 13q34'te yer alan F7 geni, FVII'yi kodlar ve ağırlıklı olarak hepatositlerde eksprese edilir1. F7'deki patojenik varyantlar, dünya çapında yaklaşık 500.000 kişide 1 olduğu tahmin edilen nadir bir otozomal resesif kanama bozukluğu olan kalıtsal Faktör VII eksikliğine neden olur2. Klinik belirtiler geniş bir çeşitlilik gösterir ve genellikle dolaşımdaki rezidüel FVII aktivitesi ile ilişkilidir3.
Çoğu vaka F7 kodlama bölgesindeki missense, nonsense veya splice-site mutasyonlarına atfedilse de, protein yapısını değiştirmeden gen ekspresyonunu azalttığı bildirilen promotör varyantları da mevcuttur4. Örneğin, c.-94C>G promotör varyantı, proksimal F7 promotörü içindeki kritik bir Sp1 bağlanma bölgesini bozarak transkripsiyon faktörü bağlanmasını engellemekte ve F7 transkripsiyonunu belirgin şekilde azaltmaktadır. Ayrıca, HNF-4 bağlanma bölgelerini etkileyen promotör mutasyonlarının da promotör aktivitesini azalttığı gösterilmiştir; bu durum, normal F7 ekspresyonu için bozulmamış transkripsiyon faktörü bağlanmasının önemini vurgulamaktadır5. c.-61T>G varyantının bir HNF4 bağlanma bölgesini bozduğu bildirilmiştir; bu da farklı promotör varyantlarının, farklı transkripsiyon faktörüne bağımlı mekanizmalar yoluyla F7 transkripsiyonunu bozabileceğini göstermektedir6.
F7 ekspresyonu, hepatositlerde yoğunlaşan transkripsiyon faktörleri, özellikle Hepatocyte Nuclear Factor 4 alpha (HNF4α) ve Liver Factor A1 (HNF1α) tarafından sıkı bir şekilde kontrol edilir7,8,9. HNF4α, bir homodimer olarak DNA'ya bağlanan ve metabolizma ile koagülasyonda rol oynayan çok sayıda hepatik geni düzenleyen bir nükleer reseptördür10. HNF4α, koaktivatörler ve kromatin yeniden modelleme kompleksleri ile etkileşimler yoluyla karaciğere özgü genleri aktive eden nükleer bir transkripsiyon faktörüdür11. Fare nakavt modellerini içeren deneysel çalışmalar, HNF4α kaybının yaygın hepatik disfonksiyona ve FVII dahil olmak üzere birden fazla koagülasyon faktörünün ekspresyonunda azalmaya yol açtığını göstermektedir12. Ayrıca, HNF4α'nın kooperatif aktivitesinin, karaciğerde eksprese edilen birkaç gende promotör aktivitesini artırdığı bildirilmiştir13. Birlikte değerlendirildiğinde bu gözlemler, bozulmuş transkripsiyon faktörü bağlanmasının, promotör varyantı taşıyıcılarında azalmış F7 ekspresyonuna katkıda bulunabileceğini düşündürmektedir.
CRISPR aktivasyonu (CRISPRa) gibi epigenomu modüle eden yaklaşımlar, DNA dizisini değiştirmeden endojen gen ekspresyonunu yukarı regüle etmek için potansiyel araçlar olarak ortaya çıkmıştır. CRISPRa, katalitik olarak inaktif Cas9'u (dCas9) seçili genomik lokuslara yönlendiren diziye özgü kılavuz RNA'lar (gRNA'lar) kullanır. dCas9 proteini, tetramerik bir herpes simplex virüsü VP16 aktivasyon alanı olan VP64'e veya kromatin yeniden şekillenmesi aracılığıyla transkripsiyonu teşvik eden bir histon asetiltransferaz olan p300 gibi transkripsiyonel aktivasyon alanlarına füzyonlanmıştır14. Belali ve ark. çalışmaları da dahil olmak üzere güncel çalışmalar, HNF4α'nın koagülasyonla ilişkili gen ağlarındaki merkezi düzenleyici rolünü desteklemekte ve transkripsiyon faktörü güdümlü modülasyon stratejilerine olan ilgiyi pekiştirmektedir15. Önceki çalışmalar, Transcription Activator-Like Effector (TALE) tabanlı ve CRISPRa aracılı yöntemlerle bozulmuş F7 promotör aktivitesinin kurtarılabileceğini göstermiştir16,17,18. Ancak, bu çalışmalar tekil promotör hedefleme stratejilerini değerlendirmişken, mevcut çalışma motif tahmini, kromatin anotasyonu, transkriptomik korelasyon, düzenleyici ağ analizi ve gRNA önceliklendirmesini tek bir hipotez üreten hesaplamalı çerçevede entegre etmektedir. Buna rağmen, HNF4α'nın F7 promotör düzenlemesindeki terapötik önemi, özellikle entegratif bir sistem perspektifinden henüz tam olarak karakterize edilmemiştir.
Bireysel promotör varyantlarına veya izole deneysel gözlemlere odaklanan önceki çalışmaların aksine, mevcut çerçeve; transkripsiyon faktörü motif tahmini, transkriptomik korelasyon, kromatin erişilebilirliği, regülatör ağ analizi, CRISPR rehber tasarımı ve genom çapında özgüllük değerlendirmesini tek bir hesaplamalı iş akışında entegre eder. Bu entegre strateji, deneysel doğrulamadan önce aday düzenleyici müdahalelerin sistematik olarak önceliklendirilmesine olanak tanıyarak, yalnızca tek bir veri türüne dayalı analizlerden daha kapsamlı bir hipotez oluşturma platformu sağlar.
Protokol
Kullanılan veri tabanları Materyal Tablosu'nda listelenmiştir.
Promotör dizisinin geri çağrılması ve hesaplamalı anotasyonu
İnsan F7 promoter bölgesi (GenBank erişim no: NG_009262.1), GRCh38/hg38 referans genom dizilimi kullanılarak NCBI'den alınmıştır. Tüm analizler, tekrarlanabilir bir hesaplama çerçevesi içinde in silico olarak gerçekleştirilmiştir. Promoter, UCSC Genom Tarayıcı'dan (RefSeq anotasyonu) elde edilen açıklanmış transkripsiyon başlangıç bölgesine (TSS) göre −1000 ila +100 bp olarak tanımlanmıştır. Sekans çıkarma işlemi FASTA formatında gerçekleştirilmiş ve koordinat tutarlılığı için Ensembl sürüm 109 ile çapraz doğrulanmıştır. Promoter sekansı; özel Python betikleri (v3.10) ve Biopython (v1.81) kullanılarak transkripsiyon faktörü bağlanma bölgeleri (TFBS), bilinen varyantlar, CpG içeriği ve GC kompozisyonu açısından hesaplamalı olarak açıklanmıştır. Tüm anotasyonlar hesaplamalı tahminleri temsil etmektedir ve deneysel olarak doğrulanmamıştır.
Transkripsiyon faktörü bağlanma bölgesi (TFBS) analizi
Tahmin edilen HNF4α ve HNF1α bağlanma motifleri, MA0114.4 (HNF4A) ve MA0046.2 (HNF1A) konum ağırlık matrisleri kullanılarak JASPAR 2022 CORE omurgalı veri tabanı aracılığıyla belirlenmiştir. Motif taraması FIMO (MEME Suite v5.5.0) kullanılarak gerçekleştirilmiştir. İş akışı; promotör FASTA yüklemesini, PWM seçimini, promotöre özgü nükleotit arka plan modellemesini ve her iki DNA zincirinin taranmasını içermektedir. Motif anlamlılığı, p ≤ 1 × 10⁻4 eşik değeri kullanılarak değerlendirilmiş ve ardından Benjamini–Hochberg düzeltmesi uygulanmıştır. FIMO çıktıları TSV dosyaları olarak dışa aktarılmış ve düzeltilmiş q değerleri <0.05 olan tahmin edilen motifler tutulmuştur. Tahmin edilen TFBS koordinatları, BEDTools (v2.30) kullanılarak dbSNP build 155 ve HGMD Professional (2023.2) veri tabanlarındaki hastalıkla ilişkili varyantlarla kesiştirilmiştir. Hastalıkla ilişkili c.-61T>G promotör varyantı, bildirilen bir HNF4α bağlanma bölgesine olan yakınlığı bağlamında değerlendirilmiş ve bunun F7 promotör aktivitesinde potansiyel bir düzenleyici rol oynadığı öne sürülmüştür. Hesaplamalı motif örtüşmesi bir tahmin olarak yorumlanmış ve deneysel olarak doğrulanmış bir TF bozulmasının kanıtı olarak kabul edilmemiştir. Belirlenen motifler, deneysel olarak doğrulanmış doluluktan ziyade tahmin edilen transkripsiyon faktörü bağlanma potansiyelini temsil etmektedir.
Evrimsel korunum ve epigenetik anotasyon
Öngörülen düzenleyici bölgelerin evrimsel korunmuşluğu, UCSC 100-omurgalı hizalamasından (hg38) elde edilen PhyloP ve PhastCons skorları kullanılarak değerlendirilmiştir. PhastCons skorları ≥0.7 olan bölgeler, korunmuş düzenleyici elementler olarak önceliklendirilmiştir.
Düzenleyici kromatin bağlamı, UCSC Genome Browser ve ENCODE veri setleri kullanılarak değerlendirildi. ENCODE transkripsiyon faktörü ChIP-seq, H3K27ac, H3K4me3, DNase I hipersensitivitesi, ATAC-seq, ChromHMM ve Segway anotasyonlarını içeren ilgili iz grubu etkinleştirilmiş hg38 dizilimi kullanıldı. Sinyal izleri, uygun olan yerlerde BED ve bigWig dosyaları olarak dışa aktarıldı. ENCODE bigWig veri setleri deepTools (v3.5.1) kullanılarak işlendi ve tekrarlanan sinyaller alt analizlerden önce ortalandı. Öngörülen TF bağlanma bölgeleri, ±50 bp örtüşme penceresi kullanılarak mevcut HNF4α/HNF1α ChIP-seq pikleri ile karşılaştırıldı. Bu analizler düzenleyici potansiyeli anlamak için kullanılmış olup in vivo fonksiyonel bağlanmayı kanıtlamamaktadır.
Gen ekspresyon korelasyon analizi
Karaciğer RNA-seq ekspresyon verileri GTEx v8'den (226 karaciğer örneği) elde edilmiştir. F7, HNF4A ve HNF1A için TPM-normalize edilmiş ekspresyon değerleri log2(TPM+1) dönüşümüne tabi tutulmuştur. Pearson korelasyon analizi, R (v4.3.1) programında iki kuyruklu test ile cor.test fonksiyonu kullanılarak gerçekleştirilmiştir. Uygulanabildiği yerlerde, çoklu karşılaştırmalar Benjamini–Hochberg yöntemi kullanılarak düzeltilmiştir. Korelasyonlar, doğrudan düzenleyici nedensellik kanıtı olarak değil, ilişkisel bağlantılar olarak yorumlanmıştır.
Düzenleyici ağ kurulumu
Protein etkileşimi ve düzenleyici ağ bilgileri, minimum 0,7 etkileşim güven puanı kullanılarak STRING v11.5'ten alınmıştır. Ağ kurulumu ve görselleştirme için STRING tarafından oluşturulan TSV etkileşim dosyaları Cytoscape v3.9.1'e aktarılmıştır. Ağ modülleri, şu parametreler kullanılarak MCODE eklentisi ile tanımlanmıştır: Derece eşik değeri = 2; Düğüm puanı eşik değeri = 0,2; K-core = 2; Maksimum derinlik = 100.
Anlamlı kümeler, sonraki aşamalardaki yorumlamalar için dışa aktarıldı. Fonksiyonel zenginleştirme, yanlış keşif oranı (FDR) <0.05 olacak şekilde STRING zenginleştirme analizi kullanılarak gerçekleştirildi. Ağ analizleri, öngörülen ve düzenlenmiş biyolojik ilişkileri temsil etmekte olup hipotez oluşturmak için kullanılmıştır.
Transkripsiyonel aktivasyonun hesaplamalı modellemesi
HNF4α modülasyonunun F7 transkripsiyonu üzerindeki öngörülen etkilerini simüle etmek amacıyla CellDesigner v4.4 kullanılarak dinamik bir düzenleyici model oluşturulmuştur. Model SBML formatında temsil edilmiş ve deterministik bir adi diferansiyel denklem (ODE) tabanlı çözücü kullanılarak simüle edilmiştir. Model girdileri şunları içermekteydi: (1) GTEx karaciğer verilerinden türetilen normalize edilmiş HNF4A, HNF1A ve F7 ekspresyon değerleri; (2) FIMO motif skorlarından türetilen göreceli transkripsiyon faktörü bağlanma afiniteleri (0–1 arası ölçeklenmiş); (3) ENCODE ATAC-seq ve DNase-seq sinyal yoğunluğundan türetilen kromatin erişilebilirlik ağırlıkları; (4) H3K27ac ve H3K4me3 profillerini içeren aktif kromatin parametreleri.
Simülasyonlar, adaptif sayısal entegrasyon kullanılarak 24 h boyunca gerçekleştirilmiş ve çıktılar önceden tanımlanmış aralıklarla kaydedilmiştir. Nakavt koşulları, transkripsiyon faktörü aktivitesi %0 olarak ayarlanarak modellenmiştir. Çıktı değişkenleri arasında normalize edilmiş F7 transkript bolluğu, göreceli promoter aktivasyon durumu ve transkripsiyon faktörü aktivitesi yer almıştır. Tüm ekspresyon çıktıları, bozulmamış bazal modele göre normalize edilmiştir (%100). Kamuya açık veri setlerinde bulunmayan parametreler, hassasiyet yönlendirmeli ayarlama kullanılarak tahmin edilmiş ve Ek Tablo 1'de sunulmuştur. Tüm model çıktıları, tanımlanmış varsayımlar altındaki hesaplamalı tahminleri temsil eder ve deneysel olarak ölçülmüş biyolojik yanıtları temsil etmez.
HNF4α motifleri için CRISPRa gRNA tasarımı
CRISPR aktivasyon (CRISPRa) hedefleri, tamamen Benchling (2024 sürümü) ve CRISPOR kullanılarak bilgisayar ortamında tasarlanmıştır. F7 promotör bölgesi (TSS'ye göre −500 ila +100 bp), yüksek güvenilirlikli HNF4α motiflerinin ±200 bp yakınındaki SpCas9 NGG PAM bölgeleri için taranmıştır. Aday kılavuzlar şu kriterlere göre filtrelenmiştir: (1) Doench 2016 on-target skoru ≥50; (2) CFD off-target skoru ≥70; (3) GC içeriği %40–60; (4) ≥4 bp uzunluğunda poly-T dizilerinin bulunmaması.
Erişilebilir düzenleyici bölgeleri önceliklendirmek için ATAC-seq'ten elde edilen öngörülen kromatin erişilebilirliği ve NuPoP'tan elde edilen nükleozom doluluk tahminleri dahil edilmiştir. dCas9-VP64 ve dCas9-p300 mimarileri kullanılarak potansiyel CRISPRa yanıtları hesaplamalı olarak modellenmiş ve yalnızca öngörülen aktivasyon potansiyeli olarak yorumlanmıştır.
Motif restorasyonu için CRISPR-Cas9 düzenleme tasarımı
Bozulmuş HNF4α tanınmasıyla ilişkili bir promotör varyantının düzeltilmesinin teorik fizibilitesini değerlendirmek için, temsili HNF4α ile ilişkili düzenleyici varyant olarak c.-61T>G varyantı seçilmiştir. c.-61T>G varyantını çevrelemek üzere gRNA-L ve gRNA-R olarak adlandırılan iki SpCas9 kılavuz RNA'sı tasarlanmış ve bunlar hem bağımsız olarak hem de birleşik bir çift-kılavuz konfigürasyonu şeklinde değerlendirilmiştir. Varyant konumunda referans promotör dizisini içeren tek zincirli HDR onarım şablonları, 100-bp homoloji kolları ile modellenmiştir. Aday kılavuzlar, öngörülen özgüllük için CRISPOR ve Cas-OFFinder kullanılarak hesaplamalı olarak değerlendirilmiş, öngörülen kesim aktivitesini tahmin etmek için ise CRISPRscan kullanılmıştır. Ardından, tekil ve birleşik kılavuz konfigürasyonları için teorik düzenleme sonuçlarını tahmin etmek amacıyla ICE tabanlı modelleme kullanılmıştır. Birleşik gRNA-L/gRNA-R konfigürasyonu, üçüncü bir bağımsız kılavuz olarak değil, bir çift-kılavuz stratejisi olarak ele alınmıştır. Öngörülen tüm düzenleme verimlilikleri ve sonuçları hesaplamalı tahminleri temsil etmekte olup; deneysel HDR verimliliğini, HNF4α bağlanmasının geri kazanılmasını, hücrelerde promotör dizisinin düzeltilmesini veya F7 transkripsiyonunun geri kazanılmasını kanıtlamamaktadır.
Epigenetik düzenleme simülasyonu ve kromatin erişilebilirliği modellemesi
Aday CRISPRa bölgelerinin çevresindeki kromatin erişilebilirliği, HepG2 hücrelerinden alınan ENCODE ATAC-seq ve DNase-seq veri setleri kullanılarak değerlendirildi. Sinyal yoğunluğu, her bir aday kılavuz dizisinin merkezinde yer alan 100 bp'lik pencereler içinde nicelendirildi. Yerel düzenleyici kromatin durumlarını sınıflandırmak için ChromHMM (15 durumlu model) ve Segway anotasyonları kullanıldı.
Aday CRISPRa hedeflerini sıralamak için (1) motif yakınlığı, (2) ATAC-seq erişilebilirliği, (3) DNase I aşırı duyarlılığı, (4) H3K27ac zenginleşmesi ve (5) H3K4me3 zenginleşmesini entegre eden bileşik bir aktivasyon skoru hesaplanmıştır. Öngörülen transkripsiyonel yanıtlar, modellenmiş kromatin koşulları altında simüle edilmiş ve teorik tahminler olarak yorumlanmıştır.
CRISPRa ve HDR stratejileri için hedef dışı risk değerlendirmesi
Genom çapındaki özgüllük değerlendirmesi, CRISPOR CFD skorlaması, Cas-OFFinder sayımı ve CRISPRscan öngörüleri kullanılarak gerçekleştirilmiştir. Aday rehberler, özellikle transkripsiyonel olarak aktif bölgelerdeki öngörülen hedef dışı etkileşimleri en aza indirmek için filtrelenmiştir.
Ek dışlama kriterleri şunları içermekteydi: (1) açıklanmış TSS bölgelerinin ±1 kb yakınındaki tahmin edilen hedef dışı bölgeler, (2) ortak promotör bölgeleriyle örtüşme, (3) enhancer elementleri ile örtüşme, (4) ChromHMM ve Segway açıklamalara dayalı olarak komşu karaciğerle ifade edilen genlerle ilişkili düzenleyici bölgeler.
Aday tasarımlara öncelik vermek için kılavuz verimliliği, öngörülen hedef dışı yükü ve kromatin bağlamını entegre eden bileşik özgüllük skorları hesaplanmıştır. Bu çok katmanlı hesaplamalı tarama stratejisi teorik özgüllüğü tahmin eder ve genom genelindeki deneysel hedef dışı doğrulamayı ikame etmez. Giriş veri setlerini, analitik araçları, filtreleme kriterlerini ve çıktı kontrol noktalarını içeren hesaplamalı iş akışının bir özeti Ek Tablo 2'de sunulmuştur.
Kritik hesaplama parametreleri
Hesaplamalı iş akışının güvenilir performansı, önceden tanımlanmış birkaç parametre ayarına bağlıydı. Motif tespiti, JASPAR HNF4A ve HNF1A konum ağırlık matrisleri ile FIMO (p < 1 × 10⁻4; q < 0.05) kullanılarak optimize edildi. Kromatin entegrasyonu, tutarlı hg38 koordinatları ve ENCODE ATAC-seq, DNase-seq, H3K27ac ve H3K4me3 veri setlerinden gelen uyumlu kanıtlar gerektirdi. Düzenleyici ağlar, STRING etkileşimleri (güven ≥0.70) ve Cytoscape'deki MCODE kümelemesi kullanılarak oluşturuldu. Dinamik simülasyonlar, GTEx kaynaklı ekspresyon değerleri, FIMO motif skorları ve ENCODE kromatin erişilebilirlik ağırlıkları ile deterministik bir ODE çözücü kullanılarak CellDesigner'da gerçekleştirildi. Aday CRISPRa kılavuz RNA'lar (gRNA'lar), Doench 2016 hedef içi skoru (≥50), CFD spesifite skoru (≥70), GC içeriği (%40–60%), minimum öngörülen hedef dışı etkiler ve erişilebilir kromatin içindeki lokalizasyonlarına göre önceliklendirildi. İş akışının tamamlandığı; başarılı motif tanımlama, ağ oluşturma, kromatin anotasyonu, gRNA seçimi ve stabil simülasyon çıktıları ile doğrulandı.
Sonuçlar
F7 promotöründeki fonksiyonel HNF4α ve HNF1α bağlanma motiflerinin tahmini
FIMO ve JASPAR 2022 veri tabanı kullanılarak yapılan hesaplamalı motif taraması, F7 geninin 1 kb'lık üst akış promotör bölgesi içinde üç yüksek güvenirlikli HNF4α ve üç HNF1α bağlanma motifi öngörmüştür. Öngörülen motifler, korunan promotör bölgeleri içinde yer almış ve hepatosit nükleer faktör tanıma dizileriyle uyumlu bulunmuştur (p < 1 × 10⁻4). Özellikle, öngörülen bu motiflerden ikisi, kalıtsal Faktör VII eksikliği ile ilişkili olduğu daha önce bildirilmiş mutasyonların yakınında konumlanmıştır. HNF4α ile ilişkili motif, c.-61T>G promotör varyantının yakınında yer almıştır. ENCODE (HepG2) ChIP-seq izleri, bu promotör bölgelerinde HNF4α ve HNF1α bağlanma sinyallerinin zenginleştiğini göstermiş ve bu hesaplamalı çerçeve içindeki varsayılan düzenleyici ilgilerini desteklemiştir (Şekil 1).
F7 ile hepatik transkripsiyon faktörü ekspresyonu arasındaki korelasyon
GTEx karaciğer dokusu örneklerinden (n = 226) elde edilen transkriptomik veriler, F7 ve HNF4A ekspresyonu (Pearson’s r = 0.68, p < 0.001) ile F7 ve HNF1A ekspresyonu (r = 0.61, p < 0.01) arasında anlamlı bir pozitif korelasyon olduğunu ortaya koymuştur. Bu korelasyonlar, F7, HNF4α ve HNF1A arasındaki bilinen düzenleyici ilişkileri yeniden doğrulamaktadır17,18. Hesaplama çerçevesi dahilinde bu veriler, iş akışının promotör varyant bağlamlarına genişletilmeden önce yerleşik biyolojiyi yansıttığını destekleyen bir iç doğrulama adımı olarak hizmet eder (Şekil 2).
Düzenleyici ağ ve kromatin manzarası analizi
STRING ve Cytoscape ile yapılan ağ modellemesi, HNF4'ünα ve HNF1α koagülasyon genleri açısından zenginleştirilmiş bir hepatik transkripsiyonel ağ içerisinde merkezi düğümler olarak işlev görürler. ENCODE'dan elde edilen epigenomik veriler, HepG2 ve primer karaciğer örneklerindeki F7 promoterünün, aktif histon modifikasyonları (H3K4me3, H3K27ac) ve açık kromatin ile işaretlenmiş bölgelerle örtüştüğünü doğrulamıştır (Ek Tablo 3 ve Şekil 1). Karşılaştırmalı transkriptomik veri setleri; F7, HNF4A ve HNF1A'nın HepG2, Huh7 ve Hep3B hücre hatlarında, hücre hatları arasında farklı ekspresyon seviyeleri göstermelerine rağmen birlikte eksprese edildiklerini ortaya koymuştur. Mevcut olan durumlarda, Huh7 ve Hep3B'deki promotör erişilebilirliği ve histon profilleri genel olarak HepG2 ile uyumlu bulunmuş ve bu durum hepatosit kaynaklı hücre hatları genelinde aktif promotör kromatin manzarasının tutarlılığını desteklemiştir (Ek Şekil 1), buna karşın hepatik olmayan hücre hatları (örneğin, K562, HeLa) önemli ölçüde azalmış kromatin erişilebilirliği göstermiştir. Bu bulgular, hepatik modeller arasındaki değişkenliğe dikkat çekerken F7'nin karaciğere özgü düzenlenmesini desteklemektedir (Şekil 3).
CRISPRa gRNA tasarımı ve simüle edilmiş transkripsiyonel reaktivasyon
Yüksek puanlı HNF4α motifleri yakınındaki proksimal F7 promotörünü hedeflemek üzere dört gRNA tasarlandı (Ek Tablo 4). Hepsi, yüksek hedef aktivitesi (>60) ve minimum öngörülen hedef dışı etkiler için önceden tanımlanmış kriterleri karşıladı. Simülasyonlar, dCas9-VP64 ve dCas9-p300'ün tek başına öngörülen F7 ekspresyonunu sırasıyla vahşi tip referansın %68 ve %76'sına çıkardığını, kombine dCas9-VP64+p300 aktivasyonunun ise öngörülen ekspresyonu vahşi tip seviyelerinin %87'sine çıkardığını öngördü (Şekil 4B; Ek Tablo 5). Burada, vahşi tip promotör aktivitesi %100 (1,0) olarak tanımlandı ve tüm simüle edilen değerler bu referansa göre normalize edildi. Bu sonuçlar, değerler deneysel olarak ölçülmüş ekspresyondan ziyade hesaplamalı tahminleri temsil etse de, kombine CRISPRa aktivasyonunun promotör mutasyonlarının neden olduğu transkripsiyonel baskılamayı potansiyel olarak telafi edebileceğini göstermektedir. Önemli olan, CRISPRa aracılı F7 restorasyonunun endojen HNF4A aktivitesine bağımlılığı, dinamik düzenleyici simülasyonlar aracılığıyla açıkça değerlendirilmiştir. CRISPRa, F7 transkripsiyonunu artırmış ancak fonksiyonel HNF4A'ya bağımlı kalmaya devam etmiştir; bu nedenle, öngörülen restorasyon, HNF4A mevcudiyetinin veya fonksiyonunun bozulduğu koşullar altında önemli ölçüde azalmıştır (Şekil 4).
In silico motif restorasyonu için CRISPR-Cas9 HDR stratejisi
HNF4α tanınmasını etkilediği rapor edilen promotör varyantları için, c.-61T>G varyantı temsili HNF4α ilişkili varyant olarak seçilirken, c.-94C>G varyantı, yerleşik bir HNF4α bozucu mutasyondan ziyade bilinen bir Sp1 bölgesi varyantı olarak ayrı tutulmuştur. HNF4α ilişkili varyant için CRISPR-Cas9 HDR düzeltme stratejileri in silico olarak modellenmiştir. Varyant bölgesini çevrelemek üzere gRNA-L ve gRNA-R olarak adlandırılan iki gRNA seçilmiş ve bunlar hem tek tek hem de kombinasyon halinde değerlendirilmiştir. Karşılık gelen tek zincirli HDR onarım şablonu, 100-bp homoloji kolları ile kanonik HNF4α bağlanma bölgesini içeren referans promotör dizisini bünyesinde barındırmıştır. Öngörülen rehber özgüllüğü ve kesim aktivitesini değerlendirmek için Cas-OFFinder ve CRISPRscan kullanılarak in silico değerlendirme yapılmış, teorik düzenleme sonuçlarını tahmin etmek için ise ICE tabanlı modelleme kullanılmıştır. Öngörülen düzenleme verimlilikleri rehber konfigürasyonuna göre değişiklik göstermiş olup, kombine gRNA-L/gRNA-R tasarımı üçüncü bir bağımsız gRNA olarak değil, çift rehber stratejisi olarak değerlendirilmiştir. c.-94C>G varyantı, yerleşik düzenleyici önemi nedeniyle daha geniş promotör analizinde tutulmuş olsa da HDR modelinde bir HNF4α motifi bozucu varyant olarak yorumlanmamıştır. Bu sonuçlar, potansiyel promotör dizisi düzeltmesinin hesaplamalı tahminlerini temsil etmekte olup deneysel HDR verimliliğini, HNF4α bağlanmasının geri kazanımını veya yabanıl tip F7 promotör aktivitesinin yeniden tesis edildiğini kanıtlamamaktadır (Şekil 5).
Kromatin erişilebilirliği ve epigenetik aktivasyon potansiyeli
HepG2 hücrelerindeki ATAC-seq ve DNase I hipersensitivite verilerinin analizi, tüm CRISPRa hedef bölgelerinin yüksek kromatin erişilebilirliğine sahip bölgelerde yer aldığını öngörmüştür. Bu bulguların HNF4α ChIP-seq ve H3K27ac zenginleşmesi ile entegrasyonu, bu bölgelerin aktivasyon potansiyelini daha da desteklemiştir. Simüle edilen epigenetik düzenleme, olumlu kromatin yeniden şekillenme sonuçları öngörmüş ve CRISPRa aracılı aktivasyon üzerine artmış transkripsiyon faktörü etkileşimleri projekte etmiştir (Şekil 6).
gRNA tasarımlarının genom genelindeki özgüllüğünün değerlendirilmesi
In silico CRISPRa gRNA taraması, hem CRISPRa hem de HDR yaklaşımlarında yüksek dizi özgüllüğü ortaya koymuştur (Ek Tablo 6). CRISPOR ve Benchling analizleri, transkripsiyonel olarak aktif promotör bölgelerinde yüksek olasılıklı hedef dışı etkileri olan tüm gRNA'ları hariç tutmuştur. CRISPRa tasarımları için ENCODE kaynaklı ATAC-seq ve H3K27ac verileri, seçilen tüm hedef bölgelerin F7-özgül açık kromatin içinde yer aldığını göstermiştir. Hiçbir aday gRNA, enhancer bölgeleriyle veya ortak promotör elementleriyle örtüşmemiştir. ChromHMM ve Segway kromatin durumu anotasyonları, bu bölgelerin hepatositlere özgü aktif promotörler olarak sınıflandırılmasını daha da desteklemiş ve komşu ko-regüle gen promotörleriyle herhangi bir örtüşme saptanmamıştır. Hedef dışı dizi benzerliği, kromatin erişilebilirliği ve regülatuar anotasyonu entegre eden kompozit hesaplamalı özgüllük skorlaması, seçilen CRISPRa rehberleri için istenmeyen transaktivasyon olasılığının düşük (%0,4–0,6) olduğunu öngörmüştür (Şekil 7). Yeniden üretilebilirliği ve tutarlı uygulamayı kolaylaştırmak amacıyla, yaygın hesaplama iş akışı sorunları, olası nedenleri ve önerilen düzeltici önlemler Ek Tablo 7'de özetlenmiştir.
VERİ KULLANILABİLİRLİĞİ:
Yazarlar, bu çalışmanın bulgularını destekleyen tüm verilerin makale içerisinde sunulduğunu ve Zenodo'da mevcut olduğunu onaylarlar: https://doi.org/10.5281/zenodo.21735831
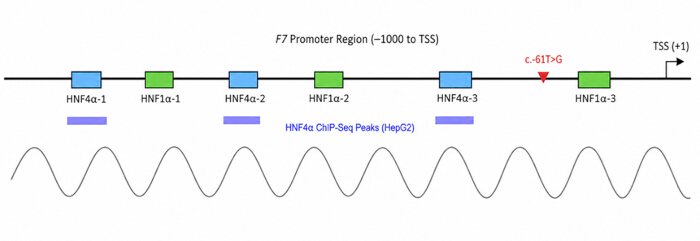
Şekil 1: F7 promotöründeki öngörülen HNF4α ve HNF1α bağlanma motifleri. F7 geninin 1 kb'lık yukarı akış promotör bölgesinin şematik gösterimi; HNF4α ve HNF1α için öngörülen altı bağlanma motifini (renkli kutular) göstermektedir. Bunlar, omurgalı korunum skorları (PhyloP) ile üst üste bindirilmiş ve patojenik c.-61T>G mutasyonu dahil olmak üzere bilinen hastalıkla ilişkili varyantlarla (kırmızı işaret) açıklanmıştır. HepG2 hücrelerinden elde edilen HNF4α ChIP-seq pikleri zenginleşmeyi göstermektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
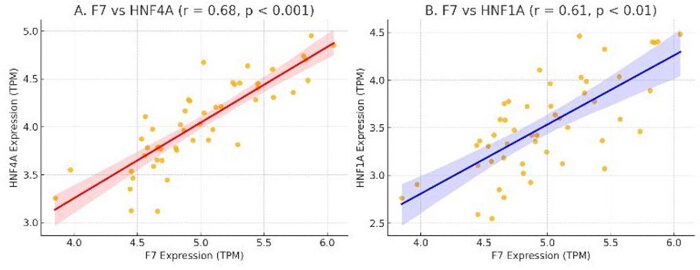
Şekil 2: F7 ile hepatik transkripsiyon faktörleri arasındaki korelasyon. (A) F7 ekspresyonu HNF4A ile güçlü bir pozitif korelasyon göstermektedir (r = 0.68, p < 0.001). (B) F7 ekspresyonu aynı zamanda HNF1A ile pozitif korelasyon göstermektedir (r = 0.61, p < 0.01). Her nokta, GTEx veri setinden alınan bir karaciğer örneğini temsil etmektedir. %95 güven aralıklarına sahip regresyon çizgileri gösterilmiştir. Korelasyonlar ilişkilendiricidir ve doğrudan düzenleyici nedenselliği kanıtlamaz. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
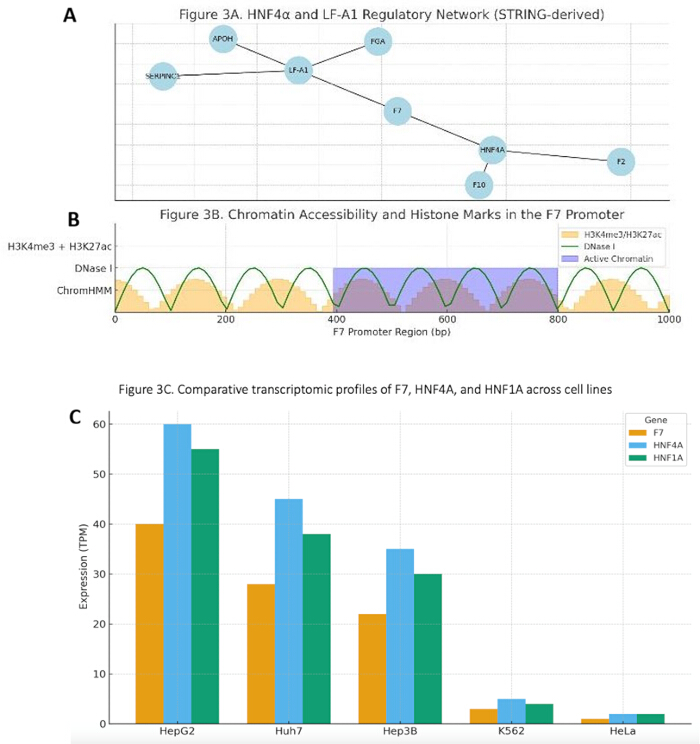
Şekil 3: Hepatik düzenleyici ağ zenginleştirme ve kromatin manzarası. (A) HNF4α merkezli STRING kaynaklı transkripsiyonel ağ, F7 ve diğer koagülasyonla ilişkili genlerle öngörülen düzenleyici ilişkileri göstermektedir. (B) UCSC tarzı tarayıcı izleri, HepG2 hücrelerinde F7 promotörü çevresindeki açık kromatini (DNase I), histon modifikasyonlarını (H3K4me3/H3K27ac) ve kromatin durum segmentasyonunu (ChromHMM) göstererek, transkripsiyonel olarak aktif bir bölge ile uyum sergilemektedir. (C) Karşılaştırmalı transkriptomikler; hepatik hücre hatlarında (HepG2, Huh7, Hep3B) değişken seviyelerde F7, HNF4A ve HNF1A'nın birlikte ekspresyonunu gösterirken, hepatik olmayan hatlarda (K562, HeLa) azalmış ekspresyon gözlenmektedir. Huh7 ve Hep3B'deki promotör erişilebilirliği ve histon profilleri genel olarak HepG2 ile uyumludur. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
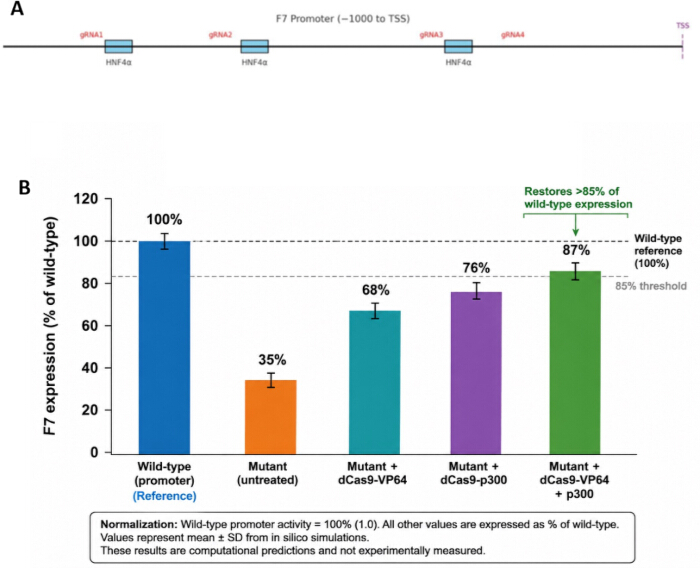
Şekil 4: CRISPRa gRNA tasarımı ve transkripsiyonel aktivasyon simülasyonu. (A) HNF4α bağlanma motiflerine ve F7 transkripsiyon başlangıç bölgesine (TSS) göre öngörülen CRISPRa kılavuz RNA (gRNA1–gRNA4) konumlarını gösteren diyagram. (B) Yabani tip ve mutant promotör bağlamlarında, farklı CRISPRa stratejileri altında F7'nin simüle edilen transkripsiyonel çıktısı. F7 ekspresyonu, %100 (1.0) olarak tanımlanan yabani tip promotöre göre normalize edilmiştir. Mutant promotör modelinde, öngörülen ekspresyon yabani tipin %35'i iken; dCas9-VP64 ile %68'e, dCas9-p300 ile %76'ya ve kombine dCas9-VP64+p300 aktivasyonu ile %87'ye yükselmiş, böylece %85 eşiği aşılmıştır. in silico simülasyonlar, HepG2 hücrelerinden epigenomik ve transkriptomik girdileri içermekte olup deneysel olarak ölçülen ekspresyon yerine bilgisayarlı öngörüleri temsil etmektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
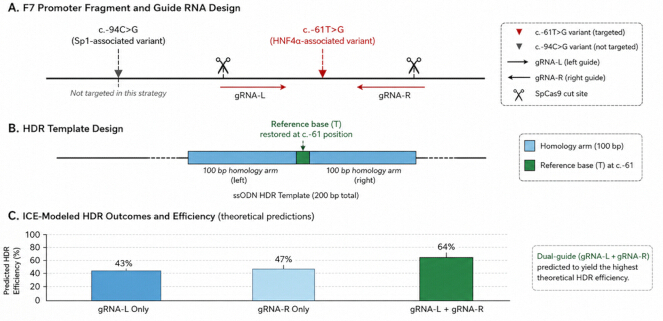
Şekil 5: Motif düzeltmesi için CRISPR-Cas9 HDR stratejisi. (A) Düzeltme için hedeflenen c.-61T>G varyantını (HNFa ile ilişkili) gösteren F7 promotör bölgesinin şeması. Bu stratejide hedeflenmediği için c.-94C>G varyantı (Sp1 ile ilişkili) referans olarak belirtilmiştir. c.-61T>G bölgesini çevrelemek üzere iki SpCas9 kılavuz RNA (gRNA-L ve gRNA-R) tasarlanmıştır. (B) c.-61 pozisyonunda referans bazı (T) içeren ve 100-bp homoloji kolları ile çevrelenmiş tek zincirli HDR (sODN) onarım şablonu. (C) Münferit kılavuzlar ve çift kılavuz (gRNA-L + gRNA-R) konfigürasyonu için ICE ile modellenmiş düzenleme verimliliği tahminleri. Çift kılavuz stratejisinin en yüksek teorik HDR verimliliğini sağlayacağı öngörülmektedir. Tüm sonuçlar hesaplama tabanlı tahminleri temsil eder ve başarılı HDR, HNF4a bağlanmasının restorasyonu veya F7 transkripsiyonunun geri kazanımını kanıtlamaz. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
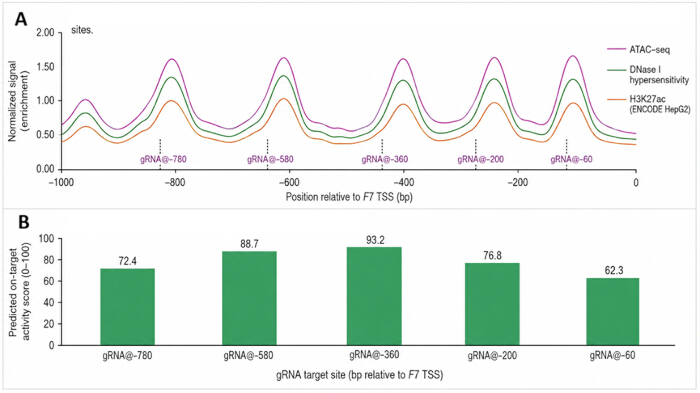
Şekil 6: Kromatin erişilebilirliği ve CRISPRa hedef bölge aktivasyon potansiyeli. (A) F7 promotörünün 1-kb yukarı akış bölgesindeki ATAC-seq, DNase I hipersensitivitesi ve H3K27ac zenginleşme izleri, artmış kromatin erişilebilirliği ve aktif düzenleyici kromatin bölgelerini göstermektedir. Dikey kesikli çizgiler, beş CRISPRa gRNA hedef bölgesinin (gRNA@−780, gRNA@−740, gRNA@−580, gRNA@−360 ve gRNA@−200) konumlarını belirtmektedir. (B) Her bir gRNA için öngörülen transkripsiyonel aktivasyon skorları, erişilebilir ve H3K27ac bakımından zengin bölgelerin hedeflenmesinin daha yüksek F7 aktivasyonu sağlayabileceğini ve en yüksek öngörülen aktivitenin gRNA@−580'de olduğunu göstermektedir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
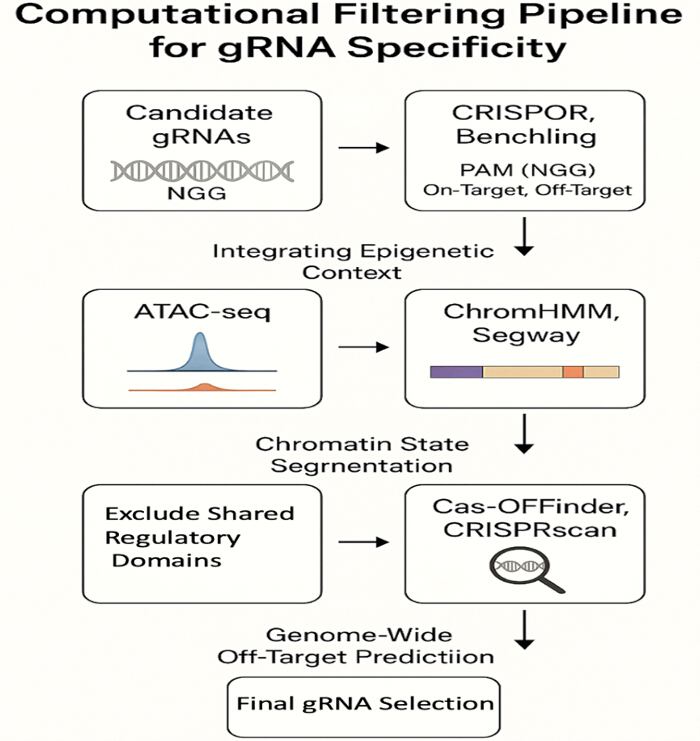
Şekil 7: gRNA özgüllüğü için hesaplamalı filtreleme hattı. Yüksek özgüllüğe sahip CRISPRa ve HDR gRNA'larını belirlemek için kullanılan in silico hattının şematik özeti. Süreç, öngörülen transaktivasyon ve kesim risklerini minimize etmek için sekans tabanlı filtrelemeyi (CRISPOR, Benchling), epigenetik bağlamı (ATAC-seq, H3K27ac), kromatin durumu segmentasyonunu (ChromHMM, Segway) ve genom genelindeki hedef dışı tahmin araçlarını (Cas-OFFinder, CRISPRscan) entegre eder. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Şekil 1: HepG2, Huh7 ve Hep3B hücrelerindeki F7 promotöründeki karşılaştırmalı kromatin erişilebilirliği ve promotörle ilişkili histon modifikasyon profilleri. Normalize edilmiş ATAC-seq (A) erişilebilirliğinin yanı sıra H3K27ac (B) ve H3K4me3 (C) zenginleşmesi, üç hepatosit türevli hücre hattı genelinde (D) geniş ölçüde tutarlı aktif promotör kromatinini göstermekte olup, bu hücrelerin F7 düzenleyici analizleri için hesaplamalı modeller olarak kullanımını desteklemektedir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 1: Hesaplamalı transkripsiyonel modelde kullanılan parametreler. F7 transkripsiyonel düzenlemesinin CellDesigner tabanlı simülasyonunda kullanılan parametre değerlerinin özeti. Parametreler; HNF4α ve HNF1α için transkripsiyon faktörü aktivite katsayılarını, ENCODE kromatin veri setlerinden türetilen promotör erişilebilirlik değiştiricilerini, transkripsiyon hız sabitlerini ve mRNA degredasyon parametrelerini içerir.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 2: Hesaplamalı iş akışı kontrol noktaları. Promotör anotasyonu, transkripsiyon faktörü bağlanma bölgesi tahmini, CRISPRa rehber seçimi, kromatin erişilebilirliği değerlendirmesi, hedef dışı değerlendirme ve simüle edilmiş genom düzenleme analizlerinin her aşamasındaki hesaplamalı araçları, girdi veri setlerini, temel filtreleme kriterlerini ve beklenen çıktıları içeren in silico analiz hattının özeti. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 3: HepG2, Huh7 ve Hep3B hücrelerindeki F7 promotöründe ENCODE kaynaklı karşılaştırmalı kromatin erişilebilirliği ve promotörle ilişkili histon modifikasyon profilleri. Normalize edilmiş ATAC-seq erişilebilirliği, H3K27ac ve H3K4me3 zenginleşmesi ile ChromHMM promotör durumu anotasyonları, hepatosit kaynaklı üç hücre hattı genelinde geniş ölçüde tutarlı aktif promotör mimarisini göstermektedir. Değerler, karşılaştırmalı in silico analizleri desteklemek için kullanılan bilgisayar tabanlı özetleri temsil etmektedir.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 4: ... hedefleyen aday CRISPRa kılavuz RNA'larının kapsamlı özgünlük ve hedef dışı analizleri F7 promotörTablo; rehber dizileri, öngörülen hedef üzerindeki etkinliği, özgünlük skorlarını, hedef dışı öngörüleri, kromatin erişilebilirliğini, düzenleyici açıklama kayıtlarını ve hesaplamalı rehber seçimi için kullanılan bileşik sıralamayı özetlemektedir. Tüm değerler şunları temsil eder: in silico tahminler.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 5: Öngörülen düzenleyici skorlar; promotör erişilebilirliği, transkripsiyon faktörü doluluğu ve CRISPRa aktivasyon parametrelerini entegre eden hesaplamalı çerçeve kullanılarak oluşturulmuştur. Değerler, yaban tip F7 promotörüne (1,0 olarak belirlenmiş; %100 ekspresyon) göre normalize edilmiş in silico tahminleri temsil eder. Bu simülasyonlar hipotez oluşturma amaçlıdır ve deneysel olarak ölçülen F7 transkripsiyonel aktivitesini temsil etmemektedir.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 6: F7 promotörünü hedefleyen seçilmiş CRISPRa ve HDR kılavuz RNA'lar için genom çapında hedef dışı analiz ve kompozit özgünlük puanlaması. Tablo; kılavuz özgünlüğünü değerlendirmek ve genom çapındaki transaktivasyon riskini in silico olarak tahmin etmek için kullanılan öngörülen hedef içi performansı, özgünlük metriklerini, hedef dışı profilleri, kromatin bağlamını ve kompozit risk puanlarını özetlemektedir.Lütfen bu dosyayı indirmek için buraya tıklayın.
Ek Tablo 7: F7 promotör analizi sırasında karşılaşılan yaygın hesaplamalı iş akışı sorunlarının özeti ve tekrarlanabilirliği, veri tutarlılığını ve güvenilir in silico modelleme sonuçlarını sağlamak için önerilen düzeltici eylemler.Lütfen bu dosyayı indirmek için buraya tıklayın.
Tartışma
Bu çalışma, transkripsiyonel regülasyonu incelemek için tamamen hesaplamaya dayalı, hipotez üreten bir çerçeve sunmaktadır. F7 geni ve kalıtsal FVII eksikliğinde aday promotora yönelik stratejilerin önceliklendirilmesi. Motif analizi, transkriptomik korelasyonlar, kromatin annotasyonları ve gRNA önceliklendirilmesini bir araya getirerek, fonksiyonel onarımı göstermekten ziyade düzenleyici ilişkileri ve müdahale edilebilirliği öngören bir işlem hattı sunar. Bu çalışmanın temel katkısı, deneysel olarak sınanabilir hedeflerin sistematik olarak daraltılmasıdır. F7 promotör
Mekanistik olarak, bulgular, hepatosit zengin transkripsiyon faktörlerinin HNF4'ü içeren bir modeli desteklemektedirα ve HNF1α bazal düzeyi korumak için iş birliği yapar F7 transkripsiyon. Korunmuş, yüksek afiniteye sahip HNF4'ün belirlenmesiα Patojenik promotör varyantları ile örtüşen motifler, cis-regülatör bağlanma kapasitesinin kaybının azalmış etkiye katkısı olabileceğini göstermektedir F7 transkripsiyon4,5,10. Hepatik gen ağlarında, HNF4α öncü benzeri bir nükleer reseptör gibi işlev görerek promotör erişilebilirliğini stabilize eder ve koaktivatör komplekslerini çeker, buna karşılık HNF1α sıklıkla transkripsiyonel çıktıyı güçlendirmek için sinerjik olarak etki eder7,11,12. Şartlar dahilinde in silico model, azaltılmış motif afinitesi veya simüle edilmiş TF eksikliği, tahmin edilenin azalmasına neden oldu F7 transkripsiyon, bu iş birliğine dayalı düzenleyici yapıyla tutarlıdır.
F7, HNF4A ve HNF1A ekspresyonu arasında gözlenen güçlü karaciğer-özgü korelasyon, paylaşılan bir düzenleyici programı desteklemektedir, ancak bunu kanıtlamamaktadır. Önemli olan, bu korelasyonların ilişkisel olması ve doğrudan transkripsiyonel kontrolü ortaya koyma yetisinin olmamasıdır. Yine de, HNF4'ün konumunu belirleyen ağ topolojisiα/HNF1α koagülasyonla ilişkili modüllerin merkezi düğümlerinde olması, önceki deneysel literatürle mekanistik olarak tutarlıdır ve bunların ileri çalışma için önceliklendirilmesini destekler19,20.
Epigenomik entegrasyon, ek bir mekanistik katman sağlar. Öngörülen HNF4 arasındaki örtüşmeα motifleri ve aktif kromatin işaretleri (H3K4me3, H3K27ac), proksimal F7 promotor, hepatosit kaynaklı veri setlerinde izin verici bir kromatin ortamında yer alır21,22. Hesaplamalı bağlamda, bu erişilebilirlik, CRISPRa gibi transkripsiyonel yukarı regülasyon stratejilerinin lokusu etkinleştirebileceğine dair teorik varsayımı destekler. Ancak kromatin durumu, hücre tipine göre oldukça değişkendir– ve bağlama bağlıdır ve ENCODE'dan elde edilen sinyaller hastalara ait hepatositleri veya hastalık durumlarını tam olarak yansıtmayabilir23,24.
CRISPRa ve HDR stratejilerinin modellenmesi, potansiyel düzenleyici etki noktaları hakkında öngörücü bilgiler sunar. Simülasyonlar, yüksek afinite gösteren HNF4'ün hedeflenmesininα motifler modellenmiş değeri artırabilir F7 belirli parametre koşullarında transkripsiyon, HDR tabanlı motifi düzeltme ise teorik olarak klasik bağlanma yapısını yeniden kurabilir. Mekanistik olarak, CRISPRa'nın transkripsiyonel kofaktörlerin (örneğin VP64 veya p300) lokal olarak toplanması yoluyla işlev görmesi beklenir ve bu, endojen hepatik transkripsiyon faktörleriyle birlikte sinerjik etki oluşturabilir10,12,16.
Model, HNF4'nin CRISPRa'ya duyarlılığının azalmasını öngördüα aktivite azalmıştı ve bu, sağlam endojen düzenleyici döngülere bağımlılığı göstermektedir. CRISPRa etkinliğinin, karaciğerdeki sağlam transkripsiyonel mekanizmaya bağlı olması beklenir. Patolojik HNF4A varyantları olan hastalarda CRISPRa yanıtı zayıf olabilir çünkü bu yöntem endojen transkripsiyonu yerine getirmekten ziyade onu artırır. Buna göre bu yaklaşım, F7 promotör varyantları ve sağlam HNF4A aktivitesi olan hastalara en uygun şekilde uygulanabilir.
Motif tahminleri doğrulamaz in vivo transkripsiyon faktörü bağlanması ve halka açık veri kümelerinden elde edilen kromatin ek açıklamaları, hastalardaki düzenleyici durumu yansıtmayabilir F7 promotör varyantları. Benzer şekilde, korelasyon analizleri doğrudan ve dolaylı düzenleyici ilişkileri birbirinden ayırt edemez.
Dinamik transkripsiyonel model, TF işbirliği, kromatin ağırlıklandırma ve transkripsiyonel kinetik ile ilgili parametre tahmini ve basitleştirici varsayımlara dayanmaktadır. Duyarlılık temelli ayarlama uygulanmış olsa da model karaciğer gen regülasyonunun bir soyutlaması olmaya devam eder ve doğrusal olmayan ya da bağlama özgü regülatör davranışları yansıtmayabilir. Parametrelerdeki küçük değişiklikler, öngörülen kurtarma büyüklüklerini değiştirebilir. Modelin dayanıklılığını artırmak amacıyla tahmini transkripsiyon faktörü aktivite katsayıları ve kromatin erişilebilirlik ağırlıkları, mümkün olduğunca halka açık biyolojik veri kümelerinden seçilerek iyileştirilmiştir. üzerinden duyarlılık kılavuzlu parametre ayarı. Aday düzenleyici stratejilerin niteliksel sıralaması biyolojik olarak olası parametre aralıklarında genel olarak sabit kalsa da, transkripsiyonel kurtarma ile ilgili niceliksel tahminler hâlâ model varsayımlarına bağlı olduğundan dikkatle yorumlanmalıdır. Buna göre, tahmin edilen kurtarma oranları, biyolojik etkinliğin kesin tahminleri olarak değil, karşılaştırmalı önceliklendirme amacıyla öncelikle tasarlanmıştır.
CRISPR kılavuzunun önceliklendirilmesi şu kriterlere dayanıyordu: in silico gerçek dünya düzenleme veya aktivasyon verimliliğini tam olarak tahmin edemeyen skorlama algoritmaları. Çok katmanlı olmasına rağmen, hedef dışı risk değerlendirmesi, GUIDE-seq veya Digenome-seq gibi deneysel genom çapında taramaların yerini tutamaz25,26Ayrıca, klinik genom düzenleme için biyogüvenliği ortaya koymak açısından yalnızca hesaplamalı hedef dışı etki tahmini yetersizdir. Kılavuz RNA'ların önceliklendirilmesi için birden fazla tahmin aracı birleştirilmiş olsa da, kesin biyogüvenlik, genom çapında hedef dışı taramalar, transkriptomik profilleme ve uzun süreli işlevsel doğrulamayı gerektirir. Gelecekteki translasyonel gelişimler, istenmeyen genomik veya epigenomik etkileri en aza indirmek amacıyla geçici CRISPR taşıma sistemlerinin, doz optimizasyonunun ve kapsamlı toksikolojik değerlendirmenin ek olarak dahil edilmesi gerekir. Benzer şekilde, hepatositlerde HDR verimliliği genellikle düşüktür. vücut içindeve mevcut simülasyonlar DNA onarım yolu rekabetini veya hücre döngüsü etkilerini modellememektedir.
Çevrimsel uygulanabilirlik hâlâ belirsizdir. CRISPR tabanlı sistemlerin karaciğer hücrelerine verimli ve güvenli şekilde taşınması önemli bir engel olmaya devam etmektedir. AAV vektörleri, taşıma kapasitesi ve immünolojik reaksiyon açısından sınırlamalarla karşılaşırken, lipid nanopartikül sistemleri karaciğer özgünlüğü ve kalıcılık açısından daha fazla iyileştirilmeye ihtiyaç duymaktadır.27,28. Bu pratik hususlar açıkça modellenmemiştir ve gerçek dünya uygulanabilirliğini önemli ölçüde etkileyebilir. Benzer şekilde, HDR temelli promotör düzeltme stratejisi klinik olarak optimize edilmiş bir tedavi yaklaşımı olarak değil, hesaplamalı bir kavram kanıtı olarak değerlendirilmelidir. Öngörülen düzenleme verimliliğinin %45 olması尽管–%65, hesaplama çerçevesi içinde teşvik edici olsa da, olgun hepatositlerde gerçek HDR verimliliği genellikle sınırlıdır çünkü homoloji yönünde onarım bölünmeyen hücrelerde nispeten verimsizdir. Sonuç olarak, prime düzenleme veya baz düzenleme gibi ortaya çıkan teknolojiler, promotör varyantlarını düzeltmek için nihai olarak daha klinik olarak uygulanabilir yaklaşımlar sunabilir. vücut içinde. HepG2 hücresinden türetilen ENCODE veri kümeleri kapsamlı karaciğer ek açıklamaları sunsa da primer insan hepatositlerini tam olarak yeniden oluşturamaz. Bu nedenle, mevcut analizler, klinik uygulamaya geçilmeden önce primer hepatositlerde, karaciğer organoidlerinde ve uygun hayvan modellerinde doğrulanması gereken ilk hesaplamalı önceliklendirme çerçevesi olarak değerlendirilmelidir. Kısmi klinik öneminin F7 bu bağlamda yukarı regülasyon hâlâ spekülatiftir. Önceki klinik gözlemler plazma FVII'deki hafif artışların kanama riskini azaltabileceğini gösterse de, bu çalışma öngörülen transkripsiyonel değişikliklerin işlevsel protein düzeltmesine veya klinik faydaya çevrileceğini kanıtlamamaktadır16,17.
Bu sınırlamalara rağmen, çerçeve daha geniş kavramsal değere sahiptir. Entegre işlem hattı, kodlama dışı varyantlardan etkilenen karaciğerde ifade edilen genler için düzenleyici müdahalelerin önceliklendirilmesinde promotör yapısı, transkripsiyon faktörü bağımlılığı ve kromatin bağlamının birlikte nasıl analiz edilebileceğini göstermektedir.29,30,31.
HNF4'ün yanı sıraα ve HNF1α, SP1, karaciğer spesifik kromatin erişilebilirliğini ve transkripsiyonel aktiviteyi oluşturmak için hepatositçe zengin faktörlerle iş birliği yapan önemli bir transkripsiyonel düzenleyiciyi temsil eder. Bu nedenle, düzenleyici aktivite F7 promotor, HNF4'ü içeren koordine bir transkripsiyon faktörü ağı aracılığıyla düzenleniyor olabilirα, HNF1αve tek başına bireysel faktör bağlanma olaylarından ziyade SP1 yoluyla. HNF4α-ilgili düzenleyici bölgeler daha önce tanımlanmış olsa da, bu çalışmada sunulan hesaplamalı çerçeve bu düzenleyici elemanları yeniden belirler ve CRISPR temelli yaklaşımlar kullanarak hedefe yönelik onarım potansiyellerini değerlendirir.
Bu çerçeve, transkripsiyon faktörü motif tahminini CRISPR temelli hedeflemeyle birleştirerek terapötik tasarımı yönlendirir. Öngörülen HNF4α düzenleyici motifler, endojen ifadeyi artırmayı amaçlayarak CRISPR aktivasyonu (CRISPRa) gRNA tasarımı için aday bölgeler olarak kullanıldı F7 genomik diziye dokunmadan transkripsiyon. Ayrıca, düzenleyici faktör bağlanma potansiyellerinin öngörülmesini yeniden kazanmak amacıyla, bozulmuş veya alt optimal düzenleyici motifler, CRISPR-Cas9 aracılı dizi düzeltmesi için önceliklendirilebilir. Bu uygulamalar, modelin bir tam genom düzenleyici tarama platformu olarak kullanımını vurgularken, düzenleyici aktivitenin ve terapötik uygulanabilirliğin doğrulanması için deneysel çalışmaların gerekli olduğunu da belirtir. Bu işlem hattı, HNF4'ü bozabileceğinin öngörüldüğü F7 promotör varyantları için tasarlanmıştır.α veya HNF1α bağlanma. İş akışı, promotör dizilerini kamuya açık transkriptomik, epigenomik ve ChIP-seq veri kümeleriyle birleştirir. Bu çerçeve karaciğer-özgü düzenleyici yapıya dayandığından, en uygun şekilde hepatositler veya hepatosit kaynaklı deneysel sistemlere uygulanır ve non-hepatik dokulara genelleştirilmemelidir. Ayrıca, işlem hattının tahmin performansı mevcut kamuya açık veri kümelerinin kalitesine bağlıdır ve bu nedenle hasta-özgü epigenetik varyasyonları veya hastalıkla ilişkili kromatin yeniden yapılanmasını tam olarak yansıtmayabilir.
İleri çalışmalarda ChIP-qPCR veya CUT&HNF4'ü doğrulamak için RUNα/HNF1α öncelikli motiflerde işgal, karaciğer hücresi kökenli hücrelerde CRISPRa fonksiyonel testler ve FVII aktivitesinin protein düzeyinde ölçümleri. Ayrıca, c.-61T gibi promotör varyantlarının allel-spesifik modelleri>G, tahmin edilen düzenleyici mekanizmaların mutasyona bağımlı şekilde işleyip işlemediğini belirlemek için gereklidir.
Geleneksel, eksojen bir şekilde genin F7 kodlama dizisi, önerilen CRISPRa çerçevesi, endojen transkripsiyonu artırmayı amaçlar F7 loğusunu koruyarak genomik düzenlenmeyi korumak. Önceki çalışmalarda TALE ve CRISPRa aracılı F7 promotör aktivitesinin geri kazanımı gösterilmiştir16,17Buna karşılık, bu çalışma, deneysel doğrulamadan önce promotöre hedefleyen stratejilerin önceliklendirilmesi için entegre bir hesaplamalı çerçeve sunmaktadır. HDR aracılı promotör düzeltmesi teorik olarak doğal DNA dizisini geri kazandırır ancak özellikle sessiz hepatositlerde nispeten verimsiz olan homolojiye dayalı onarıma bağlıdır. Sonuç olarak, bu hesaplamalı çerçeve, transkripsiyon faktörü bağlanmasını bozduğu öngörülen promotör varyantları için kalıcı genomik dizi değişikliğinden kaçınarak avantaj sağlayabilecek tamamlayıcı bir regülatuar strateji olarak CRISPRa'yı konumlandırmaktadır. Bu karşılaştırmalar, terapötik üstünlüğü kanıtlamak amacıyla değil, gelecekteki deneysel değerlendirmeler için aday yaklaşımların önceliklendirilmesi amacıyla yapılmıştır.
Bu mekanistik içgörülere rağmen vurgulanması gereken birkaç önemli sınırlama vardır. Birincisi ve en önemlisi, tüm bulgular hesaplamalı analizlerden ve simüle edilmiş modellerden elde edilmiştir; deneysel doğrulama yapılmamıştır. Deneysel doğrulamanın eksik olması bu çalışmanın temel sınırlamasını oluşturur. Tahmin edilen tüm transkripsiyon faktörü bağlanma olayları, CRISPRa aracılı transkripsiyonel aktivasyon, HDR verimlilikleri ve off-target değerlendirmeleri hesaplamalı tahminlerdir ve bu nedenle deneysel olarak doğrulanmış biyolojik olgular yerine test edilebilir hipotezler olarak yorumlanmalıdır. Gelecekteki çalışmalarda bu bulguların luciferaz promotör-raporör assayleri, ChIP-qPCR veya CUT ile doğrulanması gerekir.&HNF4'ü doğrulamak için RUN deneylerini yapınα/HNF1α işgal, hepatosit kaynaklı hücre hatlarında veya birincil hepatositlerde CRISPRa aktivasyon çalışmaları, F7 ekspresyonunun nicel PCR ve batı blot analizleri ve fonksiyonel FVII aktivitesinin geri kazanımını belirlemek için pıhtılaşma testleri.
Sonuç olarak, bu çalışma, HNF4'ün bozulmasının mekanistik olarak bilgilendirilmiş, hesaplamalı olarak elde edilmiş bir çerçevesini sunmaktadır.α/HNF1α düzenleyici yapı, azalmış olmaya katkıda bulunabilir F7 transkripsiyonu ve hedefe yönelik promotör modülasyonunun, teorik olarak, modellenen gen aktivitesini artırabileceğini. Ancak tüm sonuçlar deneysel doğrulamaya bağlı olarak tahmin niteliğindedir. Bu çalışma, tedavi edici etkinliğe dair bir kanıt olarak değil, sistematik bir hipotez üretimi çabası olarak yorumlanmalıdır.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
Teşekkürler
Yazarlar, Hızlı İzleme Araştırma Destek Programı aracılığıyla bu çalışmayı destekledikleri için Bisha Üniversitesi Lisansüstü Çalışmalar ve Bilimsel Araştırmalar Dekanlığına teşekkür ederler. Ayrıca, bu çalışma desteklenmiştir aracılığıyla Prince Sattam bin Abdulaziz Üniversitesi proje numaralı (PSAU/2026/R/1448) fon desteği ile
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Benchling | Benchling Inc. | Web platformu | CRISPR rehber RNA tasarımı ve promotör dizisi analizi için kullanıldı. |
| Cas-OFFinder | Center for Genome Engineering | Güncel versiyon | CRISPR-Cas9'un genom genelindeki hedef dışı kesim bölgelerinin tahmini için kullanıldı. |
| CellDesigner | Systems Biology Institute | v4.4 | Transkripsiyonel regülasyonun in silico modellenmesi ve CRISPRa simülasyonları için kullanıldı. |
| ChromHMM | Broad Institute | Güncel versiyon | Kromatin durum segmentasyonu ve anotasyonu için kullanıldı. |
| CRISPOR | CRISPOR Team | Güncel web versiyonu | Rehber RNA verimliliğini ve tahmin edilen hedef dışı aktiviteyi değerlendirmek için kullanıldı. |
| CRISPRscan | CRISPRscan Development Team | Güncel versiyon | Tahmin edilen CRISPR-Cas9 kesim verimliliğini kestirmek için kullanıldı. |
| Cytoscape | Cytoscape Consortium | v3.9.1 | Ağ görselleştirme ve analiz platformu. |
| dbSNP Database | NCBI | Güncel sürüm | F7 promotörü içindeki bilinen tek nükleotid polimorfizmlerini belirlemek için kullanıldı. |
| dCas9-p300 CRISPRa Sistemi (hesaplamalı model) | Uygulanamaz | Uygulanamaz | Sadece simülasyon için kullanılan hesaplamalı olarak modellenmiş epigenetik aktivatör; deneysel reaktif kullanılmadı. |
| dCas9-VP64 CRISPRa Sistemi (hesaplamalı model) | Uygulanamaz | Uygulanamaz | Sadece simülasyon için kullanılan hesaplamalı olarak modellenmiş transkripsiyonel aktivatör; deneysel reaktif kullanılmadı. |
| ENCODE Project Database | ENCODE Consortium | Güncel sürüm | ChIP-seq, ATAC-seq, DNase I hipersensitivite ve histon modifikasyon veri setlerinin kaynağı. |
| F7 promotör dizisi (GenBank) | National Center for Biotechnology Information (NCBI) | NG_009262.1 | Promotör geri çağırma ve anotasyonu için kullanılan insan F7 geni referans dizisi. |
| FIMO (Find Individual Motif Occurrences) | MEME Suite | v5.5.0 | F7 promotöründeki tahmin edilen transkripsiyon faktörü bağlanma bölgelerini taramak için kullanılan hesaplamalı araç. |
| GTEx Portal | GTEx Consortium | Versiyon 8 (v8) | Korelasyon analizleri için karaciğer transkriptomik (TPM) verilerinin kaynağı. |
| Human Gene Mutation Database (HGMD) | HGMD Professional | Güncel sürüm | Hastalıkla ilişkili promotör varyantlarını belirlemek için kullanıldı. |
| ICE (Inference of CRISPR Edits) | Synthego Corporation | Güncel web versiyonu | Tahmin edilen CRISPR düzenleme sonuçlarını hesaplamalı olarak modellemek için kullanıldı. |
| JASPAR Database | JASPAR Consortium | 2022 Sürümü | HNF4α ve HNF1A bağlanma motiflerini belirlemek için kullanılan transkripsiyon faktörü bağlanma profilleri veri tabanı. |
| MCODE Plugin | Cytoscape | Güncel versiyon | Yüksek bağlantılı düzenleyici ağ modüllerini belirlemek için kullanıldı. |
| MEME Suite | MEME Suite Development Team | v5.5.0 | Motif keşfini ve motif oluşum analizini destekleyen yazılım paketi. |
| Pearson Korelasyon Analizi | İstatistiksel algoritma | Uygulanamaz | F7, HNF4A ve HNF1A ekspresyonları arasındaki ilişkileri değerlendirmek için kullanıldı. |
| PhastCons Koruma İzi | UCSC Genome Browser | 100-Omurgalı Hizalaması | Konserve genomik elementleri değerlendirmek için kullanıldı. |
| PhyloP Koruma İzi | UCSC Genome Browser | 100-Omurgalı Hizalaması | Nükleotid düzeyindeki evrimsel korumayı değerlendirmek için kullanıldı. |
| Segway | Hoffman Laboratory | Güncel versiyon | Genom segmentasyonu ve düzenleyici anotasyonu için kullanıldı. |
| Tek zincirli HDR Onarım Şablonu (hesaplamalı tasarım) | Uygulanamaz | Uygulanamaz | Promotör motif restorasyonu için in silico olarak tasarlandı; deneysel olarak sentezlenmedi. |
| SpCas9 (hesaplamalı model) | Uygulanamaz | Uygulanamaz | HDR rehber RNA tasarımı ve düzenleme simülasyonları için kullanılan hesaplamalı model. |
| STRING Database | STRING Consortium | v11.5 | Protein–protein etkileşimi ve gen düzenleyici ağları oluşturmak için kullanıldı. |
| UCSC Genome Browser | University of California, Santa Cruz | Güncel sürüm | Promotör korumasını, genom anotasyonunu ve epigenomik izleri değerlendirmek için kullanıldı. |
Kaynaklar
- Peyvandi F, Duga S, Akhavan S, Mannucci PM. Rare coagulation deficiencies. Haemophilia. 2002;8(3):308-321.
- Mariani G, Bernardi F. Factor VII deficiency. Semin Thromb Hemost. 2009;35(4):400-6. doi:10.1055/s-0029-1225762.
- Napolitano M, Siragusa S, Mariani G. Factor VII deficiency: clinical phenotype, genotype and therapy. J Clin Med. 2017;6(4):38.
- Tourbih H, Harrach A, Bencharef H, Dehbi H, Oukkache B. Molecular aspects of rare coagulation factor deficiencies. Cureus. 2025;17(7):e89102.
- Carew JA, Pollak ES, High KA, Bauer KA. Severe factor VII deficiency due to a mutation disrupting an Sp1 binding site in the factor VII promoter. Blood. 1998;92(5):1639-1645.
- Shahbazi S, Mahdian R. Factor VII Gene Defects: Review of Functional Studies and Their Clinical Implications. Iran Biomed J 2019 May;23(3):165–174.
- Sladek FM. What are nuclear receptor ligands? Mol Cell Endocrinol. 2011;334(1-2):3-13.
- Garrison WD, Battle MA, Yang C, Kaestner KH, Sladek FM, Duncan SA. Hepatocyte nuclear factor 4 alpha is essential for embryonic development of the mouse colon. Gastroenterology. 2006;130(4):1207-1220.
- Bolotin E et al. Integrated approach for the identification of human hepatocyte nuclear factor 4alpha target genes using protein binding microarrays. Hepatology. 2010;51(2):642-653.
- Walesky C, Apte U. Role of hepatocyte nuclear factor 4α (HNF4α) in cell proliferation and cancer. Gene Expr. 2015;16(3):101-108.
- Parviz F, Matullo C, Garrison WD, Savatski L, Adamson JW, Ning G, et al. Hepatocyte nuclear factor 4alpha controls the development of a hepatic epithelium and liver morphogenesis. Nat Genet. 2003;34(3):292-296.
- Odom DT et al. Control of pancreas and liver gene expression by HNF transcription factors. Science. 2004;303(5662):1378-1381.
- Rowley CW, Staloch LJ, Divine JK, McCaul SP, Simon TC. Mechanisms of mutual functional interactions between HNF-4alpha and HNF-1alpha revealed by mutations that cause maturity onset diabetes of the young. Am J Physiol Gastrointest Liver Physiol. 2006;290(3):G466-475.
- Hirakawa MP, Krishnakumar R, Timlin JA, Carney JP, Butler KS. Gene editing and CRISPR in the clinic: current and future perspectives. Biosci Rep. 2020;40(4):BSR20200127.
- Belali T, Abomughaid M, Alhujaily M. The transcription factor HNF-4α: a key player in haematological disorders. Arch Med Sci. 2021;19(6):1646-1652.
- Barbon E, Pignani S, Branchini A, Bernardi F, Pinotti M, Bovolenta M. An engineered TALE-transcription factor rescues transcription of factor VII impaired by promoter mutations and enhances its endogenous expression in hepatocytes. Sci Rep. 2016;6:28304.
- Pignani S et al. Tailoring the CRISPR system to transactivate coagulation gene promoters in normal and mutated contexts. Biochim Biophys Acta Gene Regul Mech. 2019;1862(6):619-624.
- Arbini AA, Pollak ES, Bayleran JK, High KA, Bauer KA. Severe factor VII deficiency due to a mutation disrupting a hepatocyte nuclear factor 4 binding site in the factor VII promoter. Blood. 1997;89(1):176-182.
- Greenberg D, Miao CH, Ho WT, Chung DW, Davie EW. Liver-specific expression of the human factor VII gene. Proc Natl Acad Sci U S A. 1995;92(26):12347-12351.
- Andersson R, Sandelin A. Determinants of enhancer and promoter activities of regulatory elements. Nat Rev Genet. 2020;21(2):71-87.
- Birnbaum RY, Clowney EJ, Agamy O, Kim MJ, Zhao J, Yamanaka T, et al. Coding exons function as tissue-specific enhancers of nearby genes. Genome Res. 2012;22(6):1059-1068.
- Fulco CP et al. Activity-by-contact model of enhancer-promoter regulation from thousands of CRISPR perturbations. Nat Genet. 2019;51(12):1664-1669.
- Yin H et al. Therapeutic genome editing by combined viral and non-viral delivery of CRISPR system components in vivo. Nat Biotechnol. 2016;34(3):328-333.
- Chen Y et al. Chromatin accessibility: biological functions, molecular mechanisms and therapeutic application. Signal Transduct Target Ther. 2024;9(1):340.
- Deans JR et al. HNF4α isoforms regulate the circadian balance between carbohydrate and lipid metabolism in the liver. Front Endocrinol (Lausanne). 2023;14:1266527.
- Jones C, Avino M, Giroux V, Boudreau F. HNF4α acts as upstream functional regulator of intestinal Wnt3 and Paneth cell fate. Cell Mol Gastroenterol Hepatol. 2023;15(3):593-612.
- Taha EA, Lee J, Hotta A. Delivery of CRISPR-Cas tools for in vivo genome editing therapy: trends and challenges. J Control Release. 2022;342:345-361.
- Qiu S, Pan Y, Cui Y, et al. HNF4α improves hepatocyte regeneration by upregulating PXR. FASEB J. 2024;38(14):e23830.
- Avsec Ž et al. Effective gene expression prediction from sequence by integrating long-range interactions. Nat Methods. 2021;18(10):1196-1203.
- Zahraei M et al. CRISPR/dCas9-TET1-mediated epigenetic editing reactivates miR-200c in breast cancer cells. Sci Rep. 2025;15(1):31739.
- Mariani G, Herrmann FH, Bernardi F, Schved JF, Auerswald G, Ingerslev J. Clinical manifestations, management, and molecular genetics in congenital factor VII deficiency: the International Registry on Congenital Factor VII Deficiency (IRF7). Blood. 2000;96(1):374.