Fare modelleri, embriyonik gelişimle ilgili anlayışımızı geliştirmede temel bir rol oynamaktadır. Burada, tamamen fikse edilmiş fare embriyolarında proteinlerin ve transkriptlerin boyanması için bir protokol ve sonuçta ortaya çıkan boyamanın üç boyutlu olarak nasıl nicel analiz edileceği anlatılmaktadır. Bu teknikler, temel gelişimsel hücre tiplerinin ve süreçlerinin görselleştirilmesine ve analiz edilmesine olanak tanır.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Yöntem makalesi
Tümleşik Mouse Embriyolarında Gelişimsel Protein ve Transkript Ekspresyonunun İncelenmesi için Optimize Edilmiş Yöntemler
167 görüntülenme
⸱
11 Eylül 2026
Bu makalede
Özet
Özet
Fare modelleri, embriyonik gelişime dair anlayışımızı ilerletmede çok önemli bir rol oynamıştır. Embriyolardaki proteinlerin ve transkriptlerin ekspresyonunun ve lokalizasyonunun analizi, gelişimin ve hastalıkların altında yatan hücresel ve moleküler mekanizmaların aydınlatılması açısından kritik öneme sahiptir. Ancak, fare embriyolarındaki transkript ve proteinleri analiz etmek için kullanılan geleneksel teknikler sınırlıdır. RNA in situ hibridizasyon, transkriptlerin bütün mount boyanmasına olanak tanır ancak multipleksleme yeteneğinden yoksundur. Buna karşılık, embriyoların kesitlenmesi multipleks hedef boyamaya imkan verir, fakat bu yalnızca iki boyutludur (2D). Daha yakın zamanda, RNAscope ve immünofloresan boyama gibi teknikler bütün mount embriyolara uygulanarak hedeflerin üç boyutlu (3D) olarak multiplekslenmesi sağlanmıştır. Bu yöntemler, geleneksel tekniklerin kısıtlamaları olmadan embriyonik gelişim için gerekli olan temel etkileşimlerin, yolakların ve hücre tiplerinin haritalanmasına imkan tanımaktadır.
Burada, RNAscope veya immünofloresan kullanılarak fikse edilmiş embriyonik gün (E) 8.5 ve E9.5 fare embriyolarının tüm vücut (whole-mount) boyanması için optimize edilmiş yöntemleri tanımlıyoruz. Her iki yöntem de tek bir embriyoda aynı anda 4 hedefe kadar çoklu saptamaya olanak tanır. Ayrıca, gelişim sırasındaki proteinler ve transkriptler arasındaki etkileşimi görselleştirmek için aynı embriyoda immünofloresan boyamanın RNAscope ile birleştirilmesi için bir yöntem sunuyoruz. Dahası, Zeiss Arivis Pro yazılımını kullanarak hedef ekspresyonunun tüm embriyo boyunca ve tanımlanmış gelişimsel hücre tipleri içinde konfokal görüntüleme ve 3D analizine yönelik bir işlem hattı tanımlıyoruz. Bu yöntemler birlikte, çoklu protein ve transkript hedeflerinin 3D ortamda kapsamlı analizini sağlayarak, erken ila orta embriyogenezdeki hücresel ve moleküler etkileşimlerin çözümlenmesi için güçlü bir sistem sunar.
Giriş
Fare modelleri, fare ve insan gelişimi arasındaki homoloji ve Cre-LoxP veya CRISPR/Cas91,2 gibi temel tekniklerin kullanımıyla gen ifadesini modüle edebilme yeteneği sayesinde, insanla ilişkili gelişimsel süreçlerin in vivo olarak anlaşılmasını sağlayarak gelişimsel biyolojideki ilerlemelerde etkili rol oynamıştır. Genomik bölgelerin yaklaşık %90'ı fareler ve insanlar arasında korunmuştur3 ve fareler ile insanlar birçok gelişimsel süreci paylaşır. Örneğin, hem fareler hem de insanlar; zigot oluşumuyla başlayıp blastokiste ilerleyen, ardından implantasyon ve gastrülasyonla devam eden benzer bir embriyogenez zaman çizelgesini izlerler4. Ayrıca, çoğu organın gelişimi fareler ve insanlar arasında benzerdir. Örneğin, hem insan hem de fare kalbi; dört odacıklı bir kalp oluşturmak için benzer bir kardiyak döngülenme, atriyumların ve ventriküllerin septasyonu, kapakçık oluşumu ve çıkış yolu oluşumu sırasını takip eder5. Bu nedenle, hem gelişmekte olan hem de tam gelişmiş fare ve insan kalpleri önemli yapısal benzerlikler gösterir6,7.
Normal ve patolojik gelişimde meydana gelen süreçleri incelemek amacıyla, temel proteinlerin ve transkriptlerin mekansal olarak görüntülenmesine olanak tanıyan çok sayıda teknik geliştirilmiştir. Bu teknikler arasında immünofloresan boyama ve RNA in situ hibridizasyon yer almaktadır.
RNA in situ hibridizasyon ilk kez Gall ve Pardue tarafından tanımlanmıştır8 ve 1969 yılında John, Brinstall ve Jones tarafından9ve Buongiorno-Nardelli ile Amaldi10 1970 yılında geliştirilmiştir. Dokulardaki transkript ekspresyonunu incelemek için kullanılır.8Kısaca, istenen hedefle tamamlayıcı RNA dizisine sahip problar seçilir ve saptama için işaretleyicilerle etiketlenir. Bu etiketler arasında radyoaktif etiketler, biyotin veya digoksinigen bulunur. Sabitlenmiş örnekler, probun nüfuz etmesini sağlamak için geçirgen hale getirilir ve ardından prob dokuya hibridize edilir. Daha sonra dokular, eğer radyoaktif olarak etiketlenmişse doğrudan görüntülenir veya alkalin fosfataz ya da floresan bir boyaya konjuge edilmiş antikorlar kullanılarak etiketler görselleştirilir. RNA in situ hibridizasyon, 3D lokalizasyon için bütün monte edilmiş (whole-mount) örneklerin boyanabilmesi avantajına sahiptir11Ancak, çok spesifik uygulamalara yönelik optimize edilmiş teknikler veya kromozomların floresan işaretlemesi için kullanılan M-FISH gibi DNA hibridizasyon yöntemleri kullanılmadığı sürece, genellikle 2 hedeften fazla hedefleme yapabilen çoklama kapasitesinin eksikliği nedeniyle sınırlıdır.12,13.
İlk olarak 1941 yılında Coons ve arkadaşları tarafından geliştirilen14,15 immunofloresan, fikse edilmiş veya dondurulmuş örneklerde hedef protein tespit yöntemidir. Kısaca, dokunun hedef dışı bölgelerine olan spesifik olmayan bağlanmayı azaltmak için örnekler bloklanır. Ardından, hedef bir antigene özgü bir primer antikor ile örnekler inkübe edilir. Primer antikorlar doğrudan bir floresan boyaya veya proteine konjuge edilebilir ya da primer antikoru üreten türe yönelik, floresan konjuge bir sekonder antikor kullanılarak hedeflenebilirler. Sekonder antikorların, doğrudan konjuge edilmiş primer antikorlara göre avantajı, sinyalin amplifiye edilmesiyle daha yüksek hassasiyet sağlanmasıdır. Farklı eksitasyon ve emisyon spektrumlu floroforlara konjuge edilmiş sekonder veya doğrudan konjuge antikorlar kullanılarak, farklı türlerde üretilmiş çoklu primer antikorlarla hedef tespitinde multipleksleme yapılabilir.
RNA gibi geleneksel teknikler in situ hibridizasyon ve immünofloresans sınırlıdır. Tipik olarak, RNA in situ hibritizasyon, bir örnekte yalnızca tek bir hedefin saptanmasına izin verir; bu nedenle farklı hücre tipleri ve yolaklar arasındaki etkileşimler son derece sınırlıdır. Ayrıca, immünofloresan geleneksel olarak bütün montaj yerine doku kesitlerinde uygulandığından, uzaysal çözünürlük 2D ile sınırlı kalmaktadır. Daha yakın tarihli teknikler, 3D sistemlerde hedef saptamanın çoklanmasına odaklanmıştır. İmmünofloresan protokollerinin optimizasyonu, tekniğin bütün montajda kullanılmasına olanak sağlamıştır.16Ayrıca, immunofloresansa benzer bir şekilde, floresan işaretli problar kullanılarak transkript tespitinin çoklanan şekilde (multiplex) gerçekleştirilmesini sağlayan teknikler geliştirilmiştir.
RNAscope ilk olarak 2012 yılında Wang ve ark. tarafından tanımlanmıştır. Bu yöntem, fikse edilmiş örneklerde transkriptlerin mekansal olarak tanımlanmasına olanak tanıyan RNA in situ hibridizasyon teknolojisine17 dayanmaktadır. Kısaca, fikse edilmiş örnekler permeabilize edilerek, tamamlayıcı transkript dizilerine bağlanan hedef probların içeri sızması sağlanır. RNAscope probları; hedef RNA'nın 18–25 baz çiftlik bir bölgesine özgü bir bölge, 14 baz çifti içeren bir kuyruk bölgesi ve iki "Z probunu" birbirine bağlayan bir ara bölgeden oluşan "çift Z tasarımına" sahiptir. İki kuyruk bölgesi birlikte, bir ön-amplifikatör tarafından bağlanan 28bp'lik bir bölge oluşturur. Bağlanan Z prob çiftleri daha sonra, ön-amplifikatör üzerindeki bölgelere bağlanan bir dizi amplifikatörün bağlanması yoluyla amplifiye edilir. Amplifikatörler, floresan işaretleyiciler veya yaban turbası peroksidaz (HRP) ile etiketlenmiş problar kullanılarak spesifik olarak hedeflenebilir. Probların çift Z tasarımının amacı, bağlanmamış probların amplifikasyonunu önleyerek spesifik olmayan amplifikasyonu azaltmaktır; çoklu amplifikatör kullanımı ise hassasiyeti artırmak içindir. RNAscope'un RNA in situ hibridizasyona göre avantajı, her hedef için farklı floresan işaretleyiciler kullanarak tek bir örnekte çoklu transkript tespitine (multiplexing) imkan tanımasıdır. RNAscope, örneklerin formalinde fikse edilmiş parafin gömülü kesitlerinde yaygın olarak kullanılmış ve 2D'de mekansal transkript tespitine olanak sağlamıştır18. Daha güncel çalışmalar, fare embriyolarında bütün montaj (whole-mount) RNAscope boyamasını tanımlayarak temel gelişimsel süreçlerin 3D analizine imkan tanımıştır19.
Burada, hem RNAscope in situ hibridizasyon hem de immunofloresan yöntemleri kullanılarak fikse edilmiş E8.5 ve E9.5 fare embriyolarının bütun boyama (whole-mount) yöntemiyle boyanmasına yönelik optimize edilmiş yöntemleri açıklıyoruz. Bu protokol, E8.5/E9.5 bütun boyama embriyoları için başarılı olan, immunofloresan ve RNAscope'u birleştiren revize edilmiş bir yöntemi tanımlamakta; Opal 780 floroforu ile kombine edilmiş dördüncü bir RNAscope probu kullanılarak bütun boyama RNAscope boyamasının bir kanal daha eklenmesine olanak sağlamakta ve boyanan embriyoların analizi için yaygın olarak uygulanabilir bir yöntemi detaylandırmaktadır. Bu yöntemler, immunofloresan boyama ve RNAscope aracılığıyla 4 proteine ve transkript hedefine kadar çoklu görselleştirmeye ve gelişim sırasındaki bütun boyama E8.5/E9.5 fare embriyolarında kantitatif 3D analize imkan tanıyarak, hücre göçü ve sinyal yolları gibi temel gelişimsel süreçlere dair bilgilerin daha fazla ilerletilmesi için kullanılabilir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
Tüm hayvan deneyleri, Birleşik Krallık Hayvanlar (Bilimsel Prosedürler) Yasası 1986'ya uygun olarak gerçekleştirilmiş ve Oxford Üniversitesi hayvan refahı inceleme kurulu ile İçişleri Bakanlığı (Proje lisansı PP7967396) tarafından onaylanmıştır.
1. E8.5 ve E9.5 fare embriyolarının diseksiyonu, dehidrasyonu ve saklanması
- Gebelik döneminin E8.5 veya E9.5 günündeki gebe dişileri onaylanmış bir yöntemle itlaf edin.
NOT: Bu çalışmadaki fareler, kan kaybı ile ölümün doğrulanmasını takiben servikal dislokasyon yöntemiyle itlaf edilmiştir. Kan kaybı, ventriküllere insizyon yapılarak kanamanın kolaylaştırılmasıyla gerçekleştirilir. CO2 inhalasyonu gibi diğer yöntemler de kullanılabilir, ancak bu protokolde test edilmemiştir. - Önce deriye, ardından abdominal duvara kesi yaparak karnı açın.
NOT: Kepek ve bakteriyel kontaminasyonu azaltmak için fareleri %70 etanol ile silin. Abdominal duvarı açarken, duvarı karnın üzerinden çekip ardından küçük bir insizyon yapmak önemlidir. Rahmi yanlışlıkla kesmemeye dikkat ederek abdominal duvarı V şeklinde kesin. - Rahmin vajina ile birleştiği noktadan keserek rahmi çıkarın. Her iki uterin boynuz için, yumurtalıklara ulaşana kadar küçük eksizyonlar yaparak rahmi abdominal yağdan ayırın.
NOT: Her bir embriyonun rahim içindeki konumunu not etmek faydalıdır. Yönlendirmeyi korumaya yardımcı olmak için yumurtalığı rahimle birlikte diseke edin. - Tek bir embriyoyu, çevresindeki rahim dokusuyla birlikte uterin boynuzdan tek tek kesin ve 5mM EDTA içeren 1× Hanks’ Basic Salt Solution içeren bir kaba yerleştirin.
- İnce pensler kullanarak, rahmi embriyodan, plasentadan ve ikisini çevreleyen decidua'dan nazikçe soyun.
- Plasentanın, embriyoyu çevreleyen maternal decidua'nın birleştiği yeri belirleyin; bu iki bölüm arasında hafif bir renk farkı olmalıdır. Plasentayı ayırmak ve embriyoyu ortaya çıkarmak için maternal decidua'yı keserek embriyoyu dikkatlice ayırın.
- Vitellüs kesesi içindeki embriyoyu geri kalan dokulardan nazikçe ayırın. İnce pensler kullanarak embriyoyu çevreleyen vitellüs kesesini çıkarın. Amniyonu çıkarın. Tam embriyonik evreyi belirlemek için somitleri sayın.
NOT: Vitellüs kesesi embriyoyu çevreler, daha kalın ve daha opaktır. Amniyon ise ince, şeffaf ve embriyoya sıkıca yapışmış durumdadır. Sonraki aşamalardaki prob/antikor penetrasyonunu sağlamak için bunun dikkatlice çıkarılması gerekir. Daha yaşlı embriyolar için, probun gelişmekte olan beyin ventriküllerinde hapsolmasını önlemek için ince penslerle baş kısmına bir delik açılabilir. Bu noktada vitellüs kesesinin mümkün olduğunca fazla çıkarılması önemlidir. Kalan vitellüs kesesi, anti-mouse sekonder antikorlar kullanıldığında güçlü şekilde floresan verir. - Opsiyonel: Kontamine kanı temizlemek için, sonraki genotipleme yöntemine bağlı olarak 500 µL PBS veya %70 etanol ile yıkayarak vitellüs kesesini genotipleme için 1,5 mL Eppendorf tüpünde saklayın. Vitellüs kesesini ince penslerle PBS içinde tutun ve manuel olarak çalkalayın. Yıkanmış vitellüs kesesini temiz bir 1,5 mL Eppendorf tüpüne veya genotipleme plakasına yerleştirin. -20 °C'de 4 haftaya kadar saklayın veya tercih edilen DNA ekstraksiyon tekniğine geçin.
- 2 mL düşük yoğunluklu polietilen (LDPE) Pasteur pipeti kullanarak embriyoyu nazikçe pipetleyin ve PFA'ya minimum diseksiyon medyumu eklemeye dikkat ederek, 1 mL taze hazırlanmış veya dondurulmuş stok %4 paraformaldehit (PFA) içeren 2 mL yuvarlak tabanlı Eppendorf tüpüne taşıyın.
NOT: E9.5 embriyoları diseke ederken, açıklığın boyutunu artırmak için Pasteur pipetinin ucunu açılı kesin. Bu, pipetleme sırasında embriyonun zarar görmesini önlemek için önemlidir. Embriyonun tüpün dibine sıkışmasını önlemek ve daha kolay geri kazanım sağlamak için yuvarlak tabanlı 2 mL Eppendorf tüplerinin kullanımı önemlidir. PFA'nın tekrarlanan dondurma-çözme döngülerinden kaçının.
UYARI: PFA toksik ve kanserojendir. Uygun kişisel koruyucu donanım (KKD) kullanın; solumayın veya yutmayın. Toz PFA solunduğunda tehlikelidir; bu nedenle çeker ocak altında hazırlanmalıdır. - Embriyoyu %4 PFA içinde, tüpler sallama yönüne dik olacak şekilde, hafif sallama ile 4 °C'de 16–24 sa boyunca inkübe edin.
- Metanol serisi yıkamalar kullanarak embriyoyu dehydre edin. LDPE Pasteur pipetleri kullanarak ve embriyoyu pipetle çekmemeye dikkat ederek PFA'yı alın ve 1 mL PBS ekleyin. Tüpler sallama düzlemine 90° olacak şekilde, hafif sallama ile oda sıcaklığında (RT) 10 dakika boyunca yıkayın. PBS içindeki %25, %50, %75 ve 2× %100 metanol yıkamaları için işlemi tekrarlayın.
- Son %100 metanol yıkamasını 1,5 mL taze %100 metanol ile değiştirin ve -20 °C'de saklayın.
NOT: Numuneler -20 °C'de yıllarca saklanabilir. Buharlaşmayı önlemeye dikkat edin.
UYARI: Metanol yanıcı ve toksiktir. Uygun KKD giyin ve yanıcılar dolabında saklayın. Solumayın veya yutmayın.
2. İmmünofloresan yöntemle E8.5 ve E9.5 embriyolarının bütün monte protein boyaması
NOT: Tüm yıkama adımları, 2 mL'lik yuvarlak tabanlı Eppendorf tüpünde 1 mL hacminde gerçekleştirilir. 1 mL'lik yıkama adımlarını, tüpler sallama düzlemine 90° açıda olacak şekilde nazikçe sallayarak uygulayın. Embriyoyu pipetle çekmemeye dikkat ederek, sıvıyı 2 mL'lik bir LDPE Pasteur pipetiyle çıkarın ve yenisini ekleyin. E9.5 embriyoları kullanılırken, istem dışı pipetleme durumunda embriyonun zarar görmesini önlemek için Pasteur pipetinin ucunu kesin. Metanolü PBS ile seyreltin. Embriyolar tek tek veya 12 adede kadar havuzlanmış embriyonun bulunduğu bir tüp içinde boyanabilir. E9.5 embriyoları için: tek bir tüpte 2 farklı koşula kadar boyama yapılabilir. Birden fazla koşul kullanılıyorsa, görüntüleme sırasında ayırt edilebilmeleri için gruplardan birinin kuyruğunu kesin.
- Embriyoları -20 °C'deki saklama alanından çıkarın ve 20–26 °C'de oda sıcaklığına (RT) gelmeleri için 10–20 dk bekletin. Benzer gelişim evrelerinin karşılaştırılabilmesini sağlamak için embriyoların somit sayılarının benzer olduğundan emin olun.
- Embriyoları 4:1:1 oranında %100 metanol: Dimetil sülfoksit (DMSO): %30 hidrojen peroksit çözeltisi içinde 2 saat boyunca ağartın ve permeabilize edin.
UYARI: Hidrojen peroksit korozif ve irite edicidir. Ciddi göz hasarına yol açabilir ve yutulduğunda zararlı olabilir. Hidrojen peroksit göze kaçarsa, birkaç dakika boyunca suyla durulayın. Hidrojen peroksit sucul yaşam için tehlikelidir; onaylanmış bir atık bertaraf tesisinde imha edin. Göz koruması dahil uygun KKD kullanın. Yutmayın. - Isıtma bloğunu 98 °C'ye önceden ısıtın, 100 µL sitrat maske açma tamponunu 10,7 mL distile su ile seyrelterek sitrat maske açma tamponunu hazırlayın.
- Örnekleri önce %70 metanol ile durulayarak, ardından %50 metanol, %25 metanol ve son olarak PBS ile oda sıcaklığında (RT) sallayarak her biri 10 dk boyunca yıkayarak rehidrate edin.
- Önceden ısıtılmış ısıtma bloğunu kullanarak sitrat maske açma tamponunu en az 20 dakika boyunca 98 °C'ye kadar ısıtın. Embriyoları sitrat maske açma tamponu ile oda sıcaklığında (RT) 3 x 10 dk yıkayın.
- Oda sıcaklığındaki yıkamalardan sonra, embriyolara önceden ısıtılmış sitrat maske açma tamponu ekleyin ve ısıtma bloğunda 98 °C'de 10 dk ısıtın. Isıdan uzaklaştırın ve en az 40 dk soğumaya bırakın.
NOT: E8.5 embriyolarda antijen geri kazanımı için sitrat maske açma tamponu kullanmayın, çünkü bu durum embriyo disosyasyonuna yol açabilir. Embriyolar sitrat maske açma tamponu içindeyken yapışkan hale gelebilir, bu nedenle kümelenme nedeniyle embriyo hasarını önlemek için yıkama sırasında örnekleri hareketsiz tutun. - Embriyoları PBS + %0,1 Triton-X içinde oda sıcaklığında (RT) sallayarak 3 × 10 dk yıkayın. Embriyoları minimum 150 µL/tüp PBS + %0,1 Triton-X + %10 normal eşek serumu içinde 4 °C'de sallayarak 16–24 saat bloke edin.
- Primer antikorları, embriyolara uygulamadan 1 saat önce önerilen konsantrasyonlarda PBS + %0,1 Triton-X + %10 normal eşek serumu içinde seyrelterek hazırlayın ve 4 °C'de saklayın.
- Bloklama çözeltisini embriyolardan uzaklaştırın ve minimum 150 µL/tüp seyreltilmiş antikor çözeltisi ekleyin. 4 °C'de sallayarak 1–3 gün inkübe edin.
NOT: Her bir antikor farklı bir türde üretilmiş olduğu sürece primer antikorlar çoklanabilir (multiplexing). Farelerde üretilen antikorların ve ardından kullanılan anti-fare sekonder antikorların kullanımı, parlak spesifik olmayan boyanmalara yol açabilir. Alternatif olarak, bazı durumlarda, primer antikorların farklı izotiplere sahip olduğu ve izotip-spesifik sekonder antikorlarla kombine edildiği durumlarda, tek bir türe ait primer antikorlar çoklanabilir. - Embriyoları PBS + %0,1 Triton-X ile durulayın, embriyoları oda sıcaklığında (RT) PBS + %0,1 Triton-X içinde 6 × 30 dk yıkayın.
- Uygun floresan konjuge sekonder antikorları ve DAPI'yi (veya alternatif çekirdek belirteci) önerilen konsantrasyonlarda %0,1 Triton-X + %10 normal eşek serumu içinde seyrelterek, embriyolara uygulamadan 1 saat önce 4 °C'de karanlıkta sekonder antikoru bloke edin.
- Yıkama çözeltisini uzaklaştırın, seyreltilmiş sekonder antikor çözeltisini embriyolara ekleyin ve karanlıkta 4 °C'de sallayarak 16–24 saat inkübe edin.
NOT: Tüm antikorlar yerine floresan konjuge F(ab) fragman sekonder antikorların kullanılmasını öneririz. F(ab) fragmanları daha küçüktür, bu nedenle daha iyi doku penetrasyonuna sahiptirler ve Fc bölgesinin yokluğu spesifik olmayan arka plan boyanmasını azaltmaya yardımcı olur. - Embriyoları PBS + %0,1 Triton-X ile durulayın, ardından embriyoları oda sıcaklığında (RT) karanlıkta sallayarak PBS + %0,1 Triton-X içinde 6 × 30 dk yıkayın. 4 °C'de karanlıkta PBS + %0,1 Triton-X içinde 4 haftaya kadar saklayın.
3. RNAscope kullanarak E8.5 ve E9.5 embriyolarının tüm vücut transkript boyaması
NOT: Tüm yıkama basamakları, 2 mL'lik bir Eppendorf tüpünde 1 mL hacimde gerçekleştirilir. 1 mL'lik yıkama basamaklarını, tüpler sallama düzlemine 90° açıda olacak şekilde hafifçe sallayarak uygulayın. Sıvıyı, embriyoyu pipetle çekmemeye dikkat ederek 2 mL'lik bir LDPE Pasteur pipeti ile çıkarın ve yenisini ekleyin. E9.5 embriyoları kullanılırken, istem dışı pipetleme durumunda embriyonun zarar görmesini önlemek için Pasteur pipetinin ucunu kesin. Metanol, PBS ile seyreltilmelidir. Hibritleme fırınını, başlamadan önce tabanına nemli bir mendil yerleştirerek 40 °C'de çalıştırın. Embriyolar tek tek veya 12 adede kadar embriyonun bir arada bulunduğu bir tüpte boyanabilir. E9.5 embriyoları için: tek bir tüpte 2 koşula kadar boyama yapılabilir. Birden fazla koşul kullanılıyorsa, görüntüleme sırasında ayırt edilebilmeleri için gruplardan birinin kuyruğunu kesin.
- Tezgahı, pipetleri ve rafı %70'lik etanol ve ardından bir RNaz dekontaminasyon solüsyonu ile temizleyerek hazırlayın.
- Embriyoları; %75, %50, %25 metanol (PBS ile seyreltilmiş), PBS ve PBS + %0,1 Tween 20 içeren dereceli bir metanol serisi aracılığıyla, her adımda 5 dakika boyunca nazikçe sallayarak rehidrate edin.
- Embriyoları ~ içinde inkübe ederek permeabilize edin75 µL Dik konumda sallayarak, oda sıcaklığında 20 dakika boyunca (3 damla) proteaz III uygulayın.
NOT: Permeabilizasyon süresi, embriyonik evreye veya boyuta göre optimize edilebilir. E8.5/E9.5 embriyoları için 20 dakikalık süre etkili sonuçlar verir; ancak E9.5 embriyolarındaki daha derin yapıları görebilmek için daha uzun inkübasyon süreleri gerekebilir. Permeabilizasyon adımlarının çok uzun tutulması, embriyo disosiasyonuna yol açabilir. - Embriyoları %0,01 Tween 20 içeren PBS ile 3 dakika boyunca yıkayın × 5 dk.
- Yaklaşık olarak ... koyarak RNAscope problarını hazırlayın 150 µL (tüp başına yaklaşık 6 damla) C1 probunu bir Eppendorf tüpüne ekleyin. Varsa C2–C4 problarını, C1 probu içerisinde 1:50 konsantrasyonda seyreltin ve bir hibridizasyon fırınında dik konumda şu sıcaklıkta inkübe edin: 40 °C embriyoların üzerine yerleştirmeden önce 10 dakika boyunca.
NOT: Bir deneydeki her bir RNAscope prob seti için ‘C’, kanal belirtecini ifade eder. Diğer tüm problar C1 probu ile seyreltildiği için bir C1 probu gereklidir. Her karışımda her kanal belirtecinden yalnızca bir prob kullanıldığından emin olun. Prob karışımları en az 1 kez yeniden kullanılabilir.× saklanırsa 4 °C 6 haftaya kadar. - Son yıkama adımını kaldırın ve ekleyin 150 µL prob karışımını embriyoların bulunduğu her bir tüpe ekleyin. Bir hibridizasyon fırınında, dik konumda, 16–24 saat boyunca şu sıcaklıkta inkübe edin: 40 °C.
- Prob karışımını uzaklaştırın ve 0.2 içinde yıkayın× 3 oranında %0,1 Tween 20 içeren Salin-Sodyum Sitrat (SSC) tamponu × Oda sıcaklığında 8 dk.
- Embriyoları, tüpler oda sıcaklığında hafifçe sallanır haldeyken %4'lük PFA ile post-fikse edin; tüpler... 90° sallantı düzlemine.
- 0,2 ile yıkayın× 3 saat boyunca %0,1 Tween 20 içeren SSC tamponu × Oda sıcaklığında 8 dk.
- Örnekleri yaklaşık olarak inkübe edin 150 µL tüp başına (6 damla) Amp1 reaktifi ile 30 dk boyunca 40 °C tüpler dik tutularak bir hibridizasyon fırınında.
- 0,2 ile yıkayın× 3 saat boyunca %0,1 Tween 20 içeren SSC tamponu × Oda sıcaklığında 8 dakika.
- Numuneleri yaklaşık olarak inkübe edin 150 µL (6 damla)/tüp Amp2 reaktifi ile 30 dakika boyunca 40 °C tüpler dik tutulacak şekilde bir hibridizasyon fırınında.
- 0,2 ile yıkayın× 3 için SSC tamponu + %0,1 Tween 20 × Oda sıcaklığında 8 dk.
- Numuneleri yaklaşık olarak inkübe edin 150 µL tüp başına (6 damla) Amp3 reaktifi ile 15 dakika boyunca 40 °C tüpler dik tutularak bir hibridizasyon fırınında.
- 0,2 ile yıkayın× 3 adet için %0,1 Tween 20 içeren SSC tamponu × Oda sıcaklığında 8 dk.
- Şurada inkübe edin 150 µL (6 damla) HRP-C1, 15 dakika boyunca 40 °C bir hibridizasyon fırınında dik konumda. 0,2 içinde yıkayın× 3 saat boyunca %0,1 Tween 20 içeren SSC tamponu × Oda sıcaklığında 8 dk.
- Numuneleri, TSA tamponunda seyreltilmiş bir florofor ile 30 dakika boyunca şu sıcaklıkta inkübe edin: 40 °C tüpler dik tutularak bir hibritleşme fırınında.
NOT: RNAscope floroforları farklı problarda kullanılabilir. En parlak olan TSA-vivid 570, ardından TSA-vivid 650 ve sonrasında TSA-vivid 520'dir. Florofor seçimini, beklenen prob bolluğuna göre yapın. - 0,2 ile yıkayın× 3 saat boyunca %0,1 Tween 20 içeren SSC tamponu × Oda sıcaklığında 8 dk.
- Örnekleri karanlıkta, yaklaşık olarak şu süreyle inkübe edin: 150 µL tüp başına (6 damla) HRP-bloklayıcı reaktif, 15 dakika boyunca 40 °C tüpler dik tutularak bir hibridizasyon fırınında.
- 0,2 ile yıkayın× 3 için SSC tamponu + %0,1 Tween 20 × Oda sıcaklığında 8 dk.
NOT: Embriyolar son yıkama çözeltisinde oda sıcaklığında bırakılarak protokol burada 16–24 saat boyunca duraklatılabilir. - Kullanılıyorsa, C2–C4 problarının her biri için gerektirdiği şekilde HRP-C1 yerine HRP-C2/C3/C4 kullanarak 3.16–3.20 arasındaki adımları tekrarlayın. Her bir ayrı prob için farklı bir florofor kullanın.
NOT: C4 probları kullanılıyorsa, RNAscope 4-plex yardımcı kiti ve Opal 780 floroforu gereklidir. Opal 780, yalnızca 4-prob çoklama (multiplexing) gerektiğinde kullanılmalı ve degradasyona karşı hassas olduğu için kullanılan son florofor olmalıdır. Florofor seçimi yapılırken, kullanılacak mikroskopi platformunun kapasitelerinin göz önünde bulundurulması önemlidir. Görüntüleme sisteminin, kullanılan tüm problar için uygun uyarılma dalga boylarına, emisyon filtrelemesine ve detektör hassasiyetine sahip olduğundan daima emin olun. Opal 780 ile boyama yaparken, 3.17–3.19 arasındaki adımları şunlarla değiştirin:- Numuneleri şu ortamda inkübe edin: 150 µL/tube TSA-DIG (TSA-tamponunda 1:100 oranında seyreltilmiş), oda sıcaklığında 30 dakika boyunca hafifçe sallanarak inkübe edilir.
- 0,2 ile yıkayın× 3 adet için SSC tamponu + %0,1 Tween 20 × Oda sıcaklığında 8 dk.
- Karanlıkta, örnekleri yaklaşık olarak şu sürede inkübe edin: 150 µL 15 dakika boyunca her tüp için (6 damla) HRP-bloklayıcı reaktif 40° bir hibridizasyon fırınında, tüpler dik tutularak.
- 0,2 ile yıkayın× 3 saat boyunca %0,1 Tween 20 içeren SSC tamponu × Oda sıcaklığında 8 dk.
- Numuneleri şurada inkübe edin 150 µL/tube 45 dakika boyunca Antikor Seyreltici/Bloklayıcı ile seyreltilmiş Opal Polaris 780 kullanılarak 40 °C tüpler dik tutularak bir hibridizasyon fırınında
- Karanlıkta, örnekleri yaklaşık olarak inkübe edin 150 µL 0,2 x SSC tamponu + %0,1 Tween 20 ile seyreltilmiş DAPI'den (çalışma konsantrasyonu 1µg/mL) 16–24 saat boyunca şu sıcaklıkta/koşulda 4 °C tüpler dik tutularak, hafifçe sallanarak
- 0,2 ile yıkayın× 3 saat boyunca %0,1 Tween 20 içeren SSC tamponu × Oda sıcaklığında 8 dk. Numuneleri kısa süreli olarak PBS içinde saklayın 4 °C.
4. Tam boy E8.5 embriyolarda kombine RNAscope ve immünofloresan boyama
- RNAscope protokolünün 3.1–3.21 adımlarını izleyin.
NOT: RNAscope permeabilizasyon adımının süresinin kısaltılması, immünofloresan üzerindeki antikor performansının iyileştirilmesine yardımcı olabilir. - Numuneleri oda sıcaklığında (RT), sallama yöntemiyle (rocking) 1 mL 0.2× SSC tamponu + %0.1 Tween 20 içerisinde 16–24 saat boyunca yıkayın.
- İmmünofloresan protokolünün 2.7–2.12 adımlarını izleyin.
5. Nokta taramalı veya dönen disk konfokal mikroskopi ile görüntüleme için bütün monte embriyoların hazırlanması
- Boyama işleminden sonra, bir LDPE Pasteur pipeti kullanarak embriyoyu nazikçe çekin ve embriyonun kurumamasına dikkat ederek ya çok kuyucuklu bir görüntüleme lamına ya da bir çukur lama aktarın. Gerekirse, örneğe zarar vermemeye dikkat ederek embriyoyu istediğiniz şekilde yönlendirin.
NOT: Çukur lamlar, embriyoların yönlendirilmesini sağlamak için faydalıdır ancak embriyo sıkışmasına ve doku hasarına yol açabilir. Çok kuyucuklu görüntüleme lamları embriyolar için daha naziktir ancak görüntüleme yönünde farklılıklara yol açabilir ve kuyu kenarı artefaktları oluşturabilir. - Opsiyonel – Doku şeffaflaştırma: Embriyodan son yıkama sıvısını nazikçe uzaklaştırıp görüntüleme kabına oda sıcaklığında (RT) 200 µL'ye kadar CUBIC-R çözeltisi ekleyerek dokuları şeffaflaştırın. Görüntüleme öncesinde embriyoyu tek bir inkübasyon için minimum 40 dk boyunca CUBIC-R içinde tutun. Şeffaflaştırılmış örnekler, inkübasyon için kullanılan CUBIC-R çözeltisinin aynında görüntülenmelidir.
UYARI: CUBIC-R solunduğunda toksiktir ve göz ile cilt tahrişine yol açabilir. Solumaktan kaçının ve kullanım sırasında uygun kişisel koruyucu ekipman (PPE) kullanın.
NOT: Embriyolar, CUBIC-R'ye maruz kaldıktan kısa bir süre sonra tamamen şeffaf hale gelir. CUBIC-R'yi yalnızca yönlendirme yaptıktan sonra doğrudan görüntüleme kabına ekleyin ve embriyoyu kaybetmemeye dikkat edin. CUBIC-R embriyodan uzaklaştırılıp yerine PBS konulursa, şeffaflaştırma işleminin kısmen geri dönmesi gerçekleşir. - Doku şeffaflaştırma yapılmayacaksa, embriyoların çok fazla kurumamasını sağlamak için kuyucukları PBS ile tamamlayın. Çukur lam kullanılıyorsa, lamı #1.5 lamellen ile kapatın. Çok odacıklı görüntüleme lamına kapak ekleyin.
NOT: Embriyolar geniş bir ışık mikroskobu yelpazesi ile görüntülenebilir. Örnek kalınlığı nedeniyle, uygun derinlikte görüntüleme yapabilen bir mikroskop seçmek yerindedir. İstenen yapıya uygun bir objektif seçin. 10x, düşük sayısal açıklıklı bir objektif, tüm embriyo boyamasının iyi bir genel görünümünü sağlar; ancak daha küçük veya daha derin yapıları yüksek çözünürlükte ayırt etmek için daha yüksek büyütmeli ve sayısal açıklıklı bir objektif gerekebilir. Embriyolar bazen görüntüleme kabı içinde hareket ederek hatalara yol açabilir, bu nedenle mümkün olduğunca görüntüleme süresini kısaltmak önemlidir.
6. Sayım ve sinyal yoğunluğu için çekirdeklerin analiz edilmesi
NOT: Bu protokol, Zeiss Arivis Pro kullanılarak çekirdeklerin analizini kapsamaktadır; benzer analizler alternatif görüntü analiz programları kullanılarak da gerçekleştirilebilir. Bu yöntem, transkriptler veya nükleer proteinler gibi nükleer örneklerle en iyi şekilde çalışır. Nükleer olmayan proteinlerin analizi yapılıyorsa, hücre yapısını görselleştirmek için örneğin hücre membranlarını boyayan CellMask gibi bir boya kullanmak ve belirteçlerin tüm hücre içindeki ekspresyonunu incelemek faydalı olabilir.
- Zeiss Arivis SIS dönüştürücü kullanarak görüntüleme dosyalarını SIS formatına dönüştürün. Dönüştürücüyü açın ve önce ‘Add files’ (Dosya ekle), ardından ‘Browse folder’ (Klasöre göz at) seçeneğini belirleyin. Kaynak görüntü klasörünü seçin. 1-to-1 (bir bire bir) dönüştürmeyi seçin. Çıktı dizininizi belirleyin ve ‘start conversion’ (dönüştürmeyi başlat) seçeneğini seçin.
- 'Dosya' (file), ardından 'aç' (open) seçeneğini belirleyip istenen SIS dosyasını seçerek SIS dosyalarını Zeiss Arivis Pro'ya aktarın.
- Görüntüleri döndürerek veri setini pipeline analizi için hazırlayın. Bunun için önce 'Data', ardından 'Transformation gallery' seçeneğini belirleyin. 'Rotation' (döndürme) fonksiyonunu seçerek, ilgi alanı sabit dikdörtgen bir kutu ile hizalanacak şekilde embriyoyu döndürün.
- ‘Data’, ardından ‘Transformation gallery’ ve sonrasında ‘Crop’ seçeneğini belirleyerek ilgi bölgelerini kırpın. İlgi bölgesini belirlemek için kenarları sürükleyin ve ‘Ok’ seçeneğine tıklayın.
NOT: E8.5 embriyolarındaki baş bölgesi için, görüntüyü otik veziküle yakın olan çentikten keserek bölgeyi baş ile sınırlandırın. E8.5 embriyolarındaki kalp bölgesi için, otik veziküle yakın olan çentiğin altından kalp tüpünün altına kadar olan kısmı kırpın. Döndürülmüş görüntüleri kırparken, döndürme işlemi sonucunda oluşan siyah bölgeleri çıkarın. - ‘Analysis’ ardından ‘Analysis Panel’ seçeneğini belirleyerek yeni bir işlem hattı başlatın. ‘new pipeline’ seçeneğini seçin.
- ROI Girişi: ROI'yi 'güncel görüntü seti' olarak, kanalları 'Tüm kanallar' ve ölçeklendirmeyi '%100' olarak ayarlayın. 'Z'yi dahil et' seçeneğinin seçili olduğundan emin olun.
NOT: Görüntüler çok büyükse veya işleme hızı çok düşükse, görüntülerin çözünürlüğü düşürülerek boyutları küçültülebilir (örneğin %50'ye). - Blob bulucu (blob finder) aracını kullanarak çekirdekleri (marker #1) bulun: ‘İşlem Ekle’ (Add Operation) seçeneğine tıklayın, ardından ‘Blob bulucu’ (Blob finder) seçeneğini bulun. Kanal kısmından, çekirdek markörünü içeren kanalı seçin. Çapı şu şekilde ayarlayın: 6 µm ve boyama yoğunluğuna göre olasılık eşiğini optimize edin. Düzlemdeki çekirdekler, çekirdekler arasında uygun bir ayrım olacak şekilde tespit edilmelidir. Bölme hassasiyetini (split sensitivity) ayarlayın; çoğu örnek için %55 makul bir değerdir. 'Normalizasyon' (Normalization) seçeneğini ilk zaman noktasına ayarlayın. Çıktı adını belirleyin, örneğin Blob finder (nuclei). Tespit edilen nesneler, işlemin üst çubuğundaki 'göz' simgesi seçilerek görselleştirilebilir.
- Blob bulucu aracını kullanarak 2 numaralı belirtecin ifadesini bulun: ‘İşlem Ekle’yi (Add Operation) seçin, ardından ‘Blob bulucu’yu (Blob finder) bulun. Kanal kısmında, çekirdek belirtecinin bulunduğu kanalı seçin. Çapı şu şekilde ayarlayın: 6 µm ve olasılık eşiğini boyama yoğunluğuna göre optimize edin. Düzlemdeki marker #2 için pozitif olan 'blobs' (lekeler), uygun bir ayrıştırma ile tespit edilmelidir. Bölme hassasiyetini (split sensitivity) ayarlayın; çoğu örnek için %55 makul bir değerdir. 'Normalizasyon'u (Normalization) ilk zaman noktasına ayarlayın. Çıktı adını belirleyin, örneğin: Blob finder (channel 2). Tespit edilen nesneler, işlemin üst çubuğundaki 'göz' simgesi seçilerek görselleştirilebilir.
- Blob bulucu aracını kullanarak marker #3'ün ekspresyonunu bulun: ‘Add Operation’ (İşlem Ekle) seçeneğini belirleyin, ardından ‘Blob finder’ı (Blob bulucu) bulun. Kanal kısmında, çekirdek marker'ını içeren kanalı seçin. Çapı şu şekilde ayarlayın: 6 µm ve boyama yoğunluğuna göre olasılık eşiğini optimize edin. Düzlemdeki markör #3 pozitif 'bloblar' uygun bir ayrımla tespit edilmelidir. Bölme hassasiyetini (split sensitivity) ayarlayın. Çoğu örnek için %55 makul bir değerdir. 'Normalizasyon'u şu şekilde ayarlayın: µ first zaman noktası. Çıktı adını belirleyin, örneğin, Blob finder (kanal 3). Saptanan nesneler, işlemin üst çubuğundaki 'göz' simgesi seçilerek görselleştirilebilir.
- İsteğe bağlı: hacim filtresi – Görüntülemede çok fazla kalıntı varsa, artefaktları gidermek için bir hacim filtresi kullanılabilir. ‘Add Operation’ seçeneğini seçin, ardından ‘Object Feature Filter’ı bulun. Girişi (input), Blob finder (nuclei) (veya adım 6.7'deki diğer set adı) olarak ayarlayın. ‘is type’ kısmını ‘any’ olarak ayarlayın. Açılır menüden Volume (volume) seçeneğini seçin ve değeri şuna ayarlayın: > 6 µm3'Filtre ekle' seçeneğini belirleyin. Açılır menüden Hacim (volume) seçeneğini seçin ve değeri şu şekilde ayarlayın: <3000 µm3Çıktıyı adlandırın, örneğin, ‘nuclei’. Modüldeki 3 çizgi butonunu seçip ‘run pipeline to here’e tıklayarak hattı buraya kadar çalıştırın.
NOT: Gerektiğinde diğer kanallar için de hacim filtreleri kullanılabilir. Tüm pozitif nesnelerin seçildiğinden emin olmak ancak kalıntıların (debris) hariç tutulmasını sağlamak için "büyüktür" ve "küçüktür" değerlerini optimize edin. - Bir diğer belirteç için pozitif olan çekirdekleri tanımlamak için intersect (kesişim) aracını kullanın. ‘Add operation’ (işlem ekle) seçeneğini belirleyin ve ‘compartments’ (kompartmanlar) aracını bulun. İlk açılır kutuya çekirdek çıktısını (örneğin, blob finder (nuclei) veya hacim filtresinden geçirilmiş ‘nuclei’) ekleyin ve kutunun solundaki düğmenin seçili olduğundan emin olun. İkinci açılır kutudan istenen kanalı (örneğin, blob finder (channel 2)) seçin. Çıktıya ‘nuclei with channel 2’ gibi bir isim verin. İstenilen tüm belirteçler için işlemi tekrarlayın.
- 2 veya daha fazla diğer markör için pozitif olan çekirdekleri bulmak için ‘Add operation’ seçeneğini seçin ve ‘Object Feature Filter’ aracını bulun. Giriş (input) kısmını çekirdek markörü (örneğin, ‘nuclei’, type= any) olarak ayarlayın ve önceki adımdaki filtreleri ‘Has tag,’ kısmından sonra ekleyin; örneğin ‘Nuclei with channel 2’ ve ‘Nuclei with channel 3’. Çıktıya bir isim verin, örneğin ‘Nuclei with channel 2 and channel 3’. İş akışını (pipeline) buraya kadar çalıştırın.
- Üst çubuktaki veri tablosu simgesine, ardından 'create' (oluştur) ve 'object count' (nesne sayımı) seçeneklerine tıklayarak çekirdekleri saymak için özel özellikler oluşturun. Özelliğe uygun bir etiket (örneğin, nuclei count) verin ve etiket menüsünden nicelleştirilmek istenen çıktıyı (örneğin, nuclei) seçin. Bu adımı, nicelleştirilecek her grup için tekrarlayın.
- ‘İşlem ekle’ (Add operation) ve ardından ‘Nesne grupları oluştur’ (Create object groups) seçeneklerini belirleyerek nesne grupları oluşturun. Girdiler kısmından analizlerde kullanılacak grupların her birini seçin. Çıktıları ‘Nesne grupları oluştur’ (Create object groups) şeklinde etiketleyin. İş akışını buraya kadar çalıştırın.
- ‘Add operation’ (İşlem ekle), ardından ‘Export object features’ (Nesne özelliklerini dışa aktar) seçeneğini belirleyerek özet sayımları dışa aktarın. Girdiler kısmından ‘create object groups’ (nesne grupları oluştur) seçeneğini seçin. Verileri kaydetmek için bir dizin seçin. Mod ‘single table’ (tek tablo) olarak ayarlanmalıdır. Features (Özellikler) sekmesine tıklayın ve adım 6.13'te oluşturulan özel özellikleri seçin.
- ‘İşlem ekle’ (Add operation), ardından ‘Nesne özelliklerini dışa aktar’ (Export object features) seçeneğini seçerek çekirdek detaylarını dışa aktarın. Girdiler kısmında, adım 6.7'de (veya hacim filtresi kullanılıyorsa 6.10'da) oluşturulan çekirdek tespitini seçin. Verileri kaydetmek için bir dizin seçin. Mod, ‘tek tablo’ (single table) olarak ayarlanmalıdır. Özellikler (features) kısmına tıklayın ve her kanal için (#1, #2, #3 vb.) ‘yoğunluklar’ (intensities) seçeneğini ve dışa aktarılmak istenen diğer özellikleri, örneğin hacmi (volume) seçin.
- Nesneleri depola kutusundan görselleştirme/analiz için gereken nesneleri seçerek nesneleri depolayın.
- Tüm adımları geri alarak, sağ üstteki 3 satırı seçip 'Export' (Dışa Aktar) düğmesine tıklayarak iş akışını kaydedin. 'pipeline'ı kaydetmek için bir 'klasör' seçin ve kaydedin.
- Bir hattı (pipeline) toplu olarak çalıştırmak için Arivis'i yeniden yükleyin. Üst çubuktan önce ‘Analysis’, ardından ‘Batch analysis’ seçeneğini belirleyin. Açılan pencerede, adım 6.18'de kaydedilen hattı seçin. ‘Files’ kısmında analiz edilecek dosyaları seçin ve ‘ok’ butonuna tıklayın. Yükleme tamamlandığında, istenmeyen görünümler silinebilir. ‘Ok’ seçeneğini belirleyin. Bir sonraki ekranda verilerin kaydedileceği dizini seçin. ‘Run’ butonuna tıklayın. Veriler, seçilen çıktı klasörüne otomatik olarak kaydedilecektir.
İş akışına genel bir bakış Şekil 1'de gösterilmiştir.
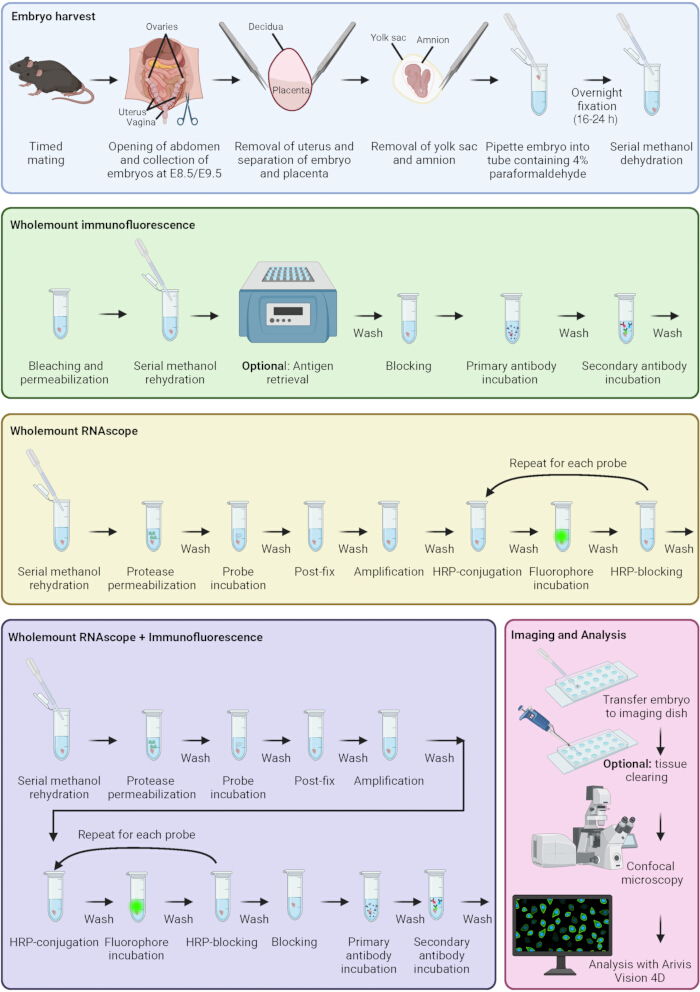
Şekil 1: İmmünofloresan ve RNAscope boyama protokolü. Embriyo toplama, immünofloresan, RNAscope, kombine immünofloresan ve RNAscope, örnek görüntüleme ve analiz aşamalarının temel basamaklarını gösteren şematik. Renkli kutular farklı protokol aşamalarına karşılık gelmektedir. BioRender ile oluşturulmuştur. Sparrow, D. (2026) https://BioRender.com/q6rmax8 Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
Hücre döngüsünün G2/M evresinde olan göç eden nöral krist hücrelerinin sayısını analiz etmek için E8.5 embriyoları bu protokol izlenerek immunofloresan ile boyanmıştır. Örnekler, hücre döngüsünün G2/M evresini görselleştirmek için PHH3'ü ve göç eden nöral krist hücrelerini görselleştirmek için SOX10'u hedefleyen antikorlar kullanılarak boyanmıştır. Embriyolar daha sonra uygun sekonder antikorlarla boyanmıştır. Çekirdekler DAPI ile boyanmıştır. Örnekler, 10x objektifli (NA = 0.4) Olympus SpinSR döner disk konfokal mikrosk...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Burada, bütün mount E8.5 ve E9.5 embriyoları içerisinde gen ve protein ekspresyonunun mekansal olarak analiz edilmesine yönelik optimize edilmiş bir yöntemi açıklıyoruz. Bu yöntemler, geleneksel RNA in situ hibridizasyon ve kesitlerin immünofloresan yöntemlerine kıyasla geliştirilmiş mekansal çözünürlüğe ve multipleksleme kapasitesine sahiptir. Bu protokol, fare embriyolarındaki gelişimsel yolakları incelemek için mevcut güncel protokoller üzerine inşa edilmiştir. Yakın tarihli bir protokolde, embriyolardaki Wnt...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Yazarlar, bu makalede yer alan mikroskopi ve görüntü analizi ile ilgili teknik destek sağladıkları için Oxford Üniversitesi, İnsan Genetiği Merkezi, Hücresel Görüntüleme Çekirdek tesisi ekibine teşekkür ederler. Yazarlar ayrıca, embriyo üretimi için hayvan bakımı ve zamanlanmış çiftleşmeler konusundaki destekleri nedeniyle Oxford Üniversitesi, Biyomedikal Hizmetler personelini teşekkürle anarlar.
Bu araştırma için finansman; British Heart Foundation Senior Fellowship FS/SBSRF/22/31022 (DBS), Additional Ventures Single Ventricle Fund (DBS), John Fell Fund, University of Oxford 0016065 (VSR) ve Medical Sciences Internal Fund, University of Oxford 0016707 (VSR) tarafından sağlanmıştır.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Plastik malzemeler/cam malzemeler | |||
| 3 ml'lik düşük yoğunluklu polietilen (LDPE) dereceli Pasteur pipetleri | Wheaton | 711116 | |
| Eppendorf Safe-lock tüpler 1,5 ml mikrotüp | Eppendorf | 0030 120.086 | |
| Ibidi µ-18 kuyucuklu lam | Ibidi | 81817 | #1.5H cam lamelli, işlem görmemiş |
| Menzel X1000 Lamel 22x50 mm #1.5 (0.16-0.19mm) | Thermo Scientific | 17284904 | |
| Çukurlu mikroskop lamları | Marienfeld Superior | 1320000 | |
| 2 ml güvenli kapaklı mikro tüp | Sarstedt | 72.695.500 | 2 ml 'Eppendorf' tüpü, yuvarlak tabanlı |
| Çözeltiler/tamponlar | |||
| 1x Antikor dilüent/bloklayıcı | Akoya Biosciences | ARD1001EA | |
| Ambion™ RnaseZap™ RNaz Dekontaminasyon Solüsyonu | Ambion | 9780.9782 | |
| Sitrattan maske çözücü tampon | Vector labs | H-3300 | Antijen maskesi çözücü solüsyon olarak etiketlenmiş, sitrik asit bazlı |
| Dimetil sülfoksit (DMSO) | Merck (Sigma-Aldrich) | D8418 | |
| Hanks' Dengeli Tuz Çözeltisi 10x | Merck (Sigma-Aldrich) | H4641 | |
| Hidrojen peroksit çözeltisi | Merck (Sigma-Aldrich) | H1009 | H2O içinde %30 (a/a) |
| Metanol | Merck (Sigma-Aldrich) | 32213-2.5L-M | |
| Normal eşek serumu | Abcam | Ab7475 | %100 stok konsantrasyonu, %10 nihai konsantrasyon |
| Paraformaldehit (PFA) tozu | Merck (Sigma-Aldrich) | 158127-500g | Su ile %4'e seyreltin. Çeker ocak içerisinde hazırlayın. Isıtıcı blok üzerinde karıştırın ve çözünmeyi kolaylaştırmak için az miktarda NaOH ekleyin. pH 7,2-7,6 |
| Fosfat tamponlu salin (PBS) | Merck (Sigma-Aldrich) | P4417 | 200 ml distile su başına 1 tablet |
| Multiplex Floresan Reaktif Kiti v2 için RNAscope 4-Plex Yardımcı Kit | ACD (Bio-Techne) | 323120 | HRP-C4 ve HRP bloklayıcı içerir |
| RNAscope™ Multiplex Floresan Tespit Kiti v2 | ACD (Bio-Techne) | 323110 | Protease Plus ve Protease III içerir, Proteaz IV, hidrojen peroksit, TSA tamponu, Amp1/2/3, Hrp-C1/2/3, HRP-bloklayıcı ve DAPI |
| 20X Salin-Sodyum-Sitrata (SSC) tampon çözeltisi | Fisher Bioreagents | BP-1325-1 | Distile su ile 0,2x konsantrasyona seyreltin |
| Doku Şeffaflaştırma Reaktifi Cubic-R+(M) [hayvanlar için] | Tokyo Chemical Industry | T3741 | |
| Triton™ X 100 | Merck (Sigma-Aldrich) | X100 | |
| Tween® 20 | Merck (Sigma-Aldrich) | P7949 | |
| Ultra saf™ 0,5M EDTA, pH8 | Invitrogen | 15575020 | |
| Primer antikorlar | |||
| Endomüsin antikoru (V.7C7) | Santa Cruz | SC-65495 | 1:50 dilüsyon kullanın. |
| Islet 1 ve Islet 2 antikoru | Gelişimsel Çalışmalar Hibridoma Bankası | 34.4DS-5 | %50'lik gliserol ile seyreltin. 1:50 dilüsyon kullanın. |
| PCNA (PC10) Mouse Monoklonal antikoru | Hücre Sinyalizasyon Teknolojisi | 2586S | 1:500 dilüsyon kullanın |
| P-histon H3 (Ser10) (6G3) Fare Monoklonal antikoru | Hücre Sinyalizasyon Teknolojisi | 9706S | 1:500 dilüsyon kullanın |
| P-histone H3 (Ser10) (D7N8E) XP® Tavşan Monoklonal antikoru | Hücre Sinyalizasyon Teknolojisi | 53348S | 1:500 dilüsyon kullanın |
| Sox10 (E6B6I) XP® Tavşan Monoklonal Antikoru | Hücre Sinyalizasyon Teknolojisi | 69661S | 1:500 seyreltme kullanın |
| Sekonder antikorlar/nükleer boyalar | |||
| AlexaFluor® 488-konjuge Affinipure® Eşek anti-fare IgG (H+L) | Jackson Immunoresearch | 715-545-151 | 1:500 dilüsyon kullanın |
| AlexaFluor® 647 konjuge Affinipure® Eşek anti-sıçan IgG (H+L) | Jackson Immunoresearch | 712-605-153 | 1:500 dilüsyon kullanın |
| AlexaFluor® 647-konjuge Affinipure® F(ab')2 Fragmanı Eşek anti-fare IgG (H+L) | Jackson Immunoresearch | 715-606-150 | 1:500 dilüsyon kullanın |
| Cy™3 Affinipure® Eşek anti-Tavşan IgG (H+L) | Jackson Immunoresearch | 711-165-152 | 1:500 dilüsyon kullanın |
| DAPI | Merck (Sigma-Aldrich) | D9542 | Kullanım yeri 1 µg/ml |
| RNAscope probları | |||
| RNAscope® Prob - Mm Sp5-C4 | ACD (Bio-Techne) | 405681-C4 | C4 probu |
| RNAscope® Prob - Mm-Dlx2-C3 | ACD (Bio-Techne) | 555951-C3 | C3 probu |
| RNAscope® Prob - Mm-Msx1 | ACD (Bio-Techne) | 421841 | C1 probu |
| RNAscope® Prob - Mm-Sox10-C2 | ACD (Bio-Techne) | 435931-C2 | C2 probu |
| RNAscope floroforlar | |||
| Opal 780 Reaktif Paketi | Akoya Biosciences | FP1501001KT | Opal 780 reaktifi, Opal TSA-DIG içerir, DMSO |
| TSA-vivid™ fluorofor 520 | ACD (Bio-Techne) | 323271 | şimdi ClariTSA™ fluorofor 520 |
| TSA-canlı™ fluorofor 570 | ACD (Bio-Techne) | 323272 | şimdi ClariTSA™ fluorofor 570 |
| TSA-vivid™ florofor 650 | ACD (Bio-Techne) | 323273 | şimdi ClariTSA™ fluorofor 650 |
| Ekipman/yazılım | |||
| Fluoview FV4000 lazer tarama mikroskop | Belirgin | fv4000 | Uyarım lazerleri: 405/488/561/640/730 nm. Saptanan dalga boyu (Şekil 3): 430-470, 500-540, 570-620, 650-710, 750-850 nm. Tespit edilen dalga boyu (Şekil 4) 430-470, 500-531, 570-620 nm. |
| Graphpad Prism 10 | Graphpad | v10.6.1 | |
| Isıtma bloğu | Hibe | QBT1 | |
| Hybrigene hibridizasyon fırını | Techne (Bibby Scientific) | FHB4DD | |
| Ixplore IX83 SpinSR Süper Çözünürlüklü Mikroskop Sistemi | Olympus | ixplore-ix83-spinsr | Uyarılma lazerleri: 405/488/561/640 nm. Emisyon filtreleri: 447/60, 525/50, 617/73, 685/40. |
| Zeiss Arivis Pro | Carl Zeiss Microscopy GmbH | sürüm 4.5 (önceki adı Arivis Vision 4D) | |
| Zeiss Arivis SIS dönüştürücü | Carl Zeiss Microscopy GmbH | v. 4.3.0 |
Kaynaklar
- Bruter AV, Varlamova EA, Okulova YD, Tatarskiy VV, Silaeva YY, Filatov MA. Genetically modified mice as a tool for the study of human diseases. Mol Biol Rep. 2024;51(1):135.
- Rashbrook VS, Brash JT, Ruhrberg C. Cre toxicity in mouse models of cardiovascular physiology and disease. Nat Cardiovasc Res. 2022;1:806–16.
- Breschi A, Gingeras TR, Guigo R. Comparative transcriptomics in human and mouse. Nat Rev Genet. 2017;18(7):425–40.
- Mole MA, Weberling A, Zernicka-Goetz M. Comparative analysis of human and mouse development: From zygote to pre-gastrulation. Curr Top Dev Biol. 2020;136:113–38.
- Krishnan A, Samtani R, Dhanantwari P, Lee E, Yamada S, Shiota K, et al. A detailed comparison of mouse and human cardiac development. Pediatr Res. 2014;76(6):500–7.
- Anderson RH, Bamforth SD. Morphogenesis of the Mammalian Aortic Arch Arteries. Front Cell Dev Biol. 2022;10:892900.
- Wessels A, Sedmera D. Developmental anatomy of the heart: a tale of mice and man. Physiol Genomics. 2003;15(3):165–76.
- Gall JG, Pardue ML. Formation and detection of RNA-DNA hybrid molecules in cytological preparations. Proc Natl Acad Sci U S A. 1969;63(2):378–83.
- John HA, Birnstiel ML, Jones KW. RNA-DNA hybrids at the cytological level. Nature. 1969;223(5206):582–7.
- Buongiorno-Nardelli M, Amaldi F. Autoradiographic detection of molecular hybrids between RNA and DNA in tissue sections. Nature. 1970;225(5236):946–8.
- Dakou E, Vanbekbergen N, Corradi S, Kemp CR, Willems E, Leyns L. Whole-mount in situ hybridization (WISH) optimized for gene expression analysis in mouse embryos and embryoid bodies. Methods Mol Biol. 2014;1211:27–40.
- Anderson R. Multiplex fluorescence in situ hybridization (M-FISH). Methods Mol Biol. 2010;659:83–97.
- Kearney L. Multiplex-FISH (M-FISH): technique, developments and applications. Cytogenet Genome Res. 2006;114(3-4):189–98.
- Burnett R, Guichard Y, Barale E. Immunohistochemistry for light microscopy in safety evaluation of therapeutic agents: an overview. Toxicology. 1997;119(1):83–93.
- Coons AH, Creech HJ, Jones RN. Immunological properties of an antibody containing a fluorescent group. P Soc Exp Biol Med. 1941;47(2):200–2.
- Bardot E, Tzavaras N, Benson DL, Dubois NC. Quantitative Whole-mount Immunofluorescence Analysis of Cardiac Progenitor Populations in Mouse Embryos. J Vis Exp. 2017(128).
- Wang F, Flanagan J, Su N, Wang LC, Bui S, Nielson A, et al. RNAscope: a novel in situ RNA analysis platform for formalin-fixed, paraffin-embedded tissues. J Mol Diagn. 2012;14(1):22–9.
- Erben L, Buonanno A. Detection and Quantification of Multiple RNA Sequences Using Emerging Ultrasensitive Fluorescent In Situ Hybridization Techniques. Curr Protoc Neurosci. 2019;87(1):e63.
- De Bono C, Lescroart F, Zaffran S. How to Study Gene Expression and Gain of Function of Hoxb1 in Mouse Heart Development. Methods Mol Biol. 2025;2889:121–37.
- Zhao R, Moore EL, Gogol MM, Unruh JR, Yu Z, Scott AR, et al. Identification and characterization of intermediate states in mammalian neural crest cell epithelial to mesenchymal transition and delamination. Elife. 2024;13.
- Guijarro C, Kelly RG. On the involvement of the second heart field in congenital heart defects. C R Biol. 2024;347:9–18.
- Bradshaw L, Chaudhry B, Hildreth V, Webb S, Henderson DJ. Dual role for neural crest cells during outflow tract septation in the neural crest-deficient mutant Splotch(2H). J Anat. 2009;214(2):245–57.
- Zawada D, Kornherr J, Meier AB, Santamaria G, Dorn T, Nowak-Imialek M, et al. Retinoic acid signaling modulation guides in vitro specification of human heart field-specific progenitor pools. Nat Commun. 2023;14(1):1722.
- Rabadan MA, Herrera A, Fanlo L, Usieto S, Carmona-Fontaine C, Barriga EH, et al. Delamination of neural crest cells requires transient and reversible Wnt inhibition mediated by Dact1/2. Development. 2016;143(12):2194–205.
- Bhattacharya D, Rothstein M, Azambuja AP, Simoes-Costa M. Control of neural crest multipotency by Wnt signaling and the Lin28/let-7 axis. Elife. 2018;7.
- Kishimoto K, Furukawa KT, Luz-Madrigal A, Yamaoka A, Matsuoka C, Habu M, et al. Bidirectional Wnt signaling between endoderm and mesoderm confers tracheal identity in mouse and human cells. Nat Commun. 2020;11(1):4159.
- De Bono C, Liu Y, Ferrena A, Valentine A, Zheng D, Morrow BE. Single-cell transcriptomics uncovers a non-autonomous Tbx1-dependent genetic program controlling cardiac neural crest cell development. Nat Commun. 2023;14(1):1551.
- Hazra R, Spector DL. Simultaneous visualization of RNA transcripts and proteins in whole-mount mouse preimplantation embryos using single-molecule fluorescence in situ hybridization and immunofluorescence microscopy. Front Cell Dev Biol. 2022;10:986261.
- Kann AP, Krauss RS. Multiplexed RNAscope and immunofluorescence on whole-mount skeletal myofibers and their associated stem cells. Development. 2019;146(20).
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında