Bu çalışma, sığırlardan elde edilen enükleasyon yapılmış oositler kullanılarak nesli tükenmekte olan bir geyik türünün klonlanmış embriyolarının elde edilmesi için bir protokol sunmaktadır. Burada, türler arası somatik hücre çekirdek transferinin detaylı metodolojisi ve zona pellucida'dan arındırılmış oositlerin sitoplast olarak kullanımı açıklanmaktadır. Ayrıca, elde edilen sonuçlar ayrıntılı olarak tartışılmaktadır.
Yöntem makalesi
Sığır (Bos taurus) Zona Pellucida-siz Oositler ve Geyik (Mazama americana) Fibroblastları Kullanılarak Türler Arası Somatik Hücre Çekirdek Transferi
Bu makalede
Özet
Özet
Hayvanlarda kullanılan üreme biyoteknolojileri, yüksek genetik değere sahip tür popülasyonlarının artırılmasını mümkün kılmaktadır. Dahası, bu teknolojiler üstün özelliklere sahip bireylerden gelen genetik materyalin korunmasına, muhafaza edilmesine ve yayılmasına yardımcı olur. Seçilmiş bireylerin genetik kurtarması, evcil türlerde bulguları diğer hayvan popülasyonlarına veya spesifik bireylere uyarlamayı amaçlayan çok sayıda çalışmaya yol açmıştır. Bu yaklaşımlardan biri, mevcut bir örneğinkiyle aynı genetik materyale sahip embriyolar üretmek için kullanılan somatik hücre çekirdek transferi (SCNT) veya klonlama yöntemidir. Bu tekniğin sınırlamaları arasında, vahşi hayvanlardan elde edilen oositlerin kısıtlı mevcudiyeti yer almaktadır. Bu nedenle, bir alternatif olarak, klonlanacak türden bir somatik hücrenin (karyoplast) nükleer donör olarak kullanıldığı ve bunun farklı bir takıma veya taksona ait bir türden elde edilen enükle edilmiş bir oosite (sitoplast) aktarıldığı türler arası somatik hücre çekirdek transferi (iSCNT) ortaya çıkmıştır. Bu yaklaşım, canlı klonlanmış embriyolar elde etmeyi mümkün kılmaktadır. Brezilya'da dokuz geyik türü bulunmaktadır ve bunların çoğu kontrolsüz avlanma, habitat kaybı ve diğer nedenlerle tehlike altındadır. Kızıl brocket geyiği (Mazama americana), bu koşullardan etkilenen türlerden biridir. Bu nedenle, bu çalışma, daha sonra alıcı dişilere transfer edilmek üzere bir embriyo bankası oluşturmak ve böylece türün hayatta kalmasını sağlamaya yardımcı olmak amacıyla, iSCNT tekniği kullanılarak kızıl brocket geyiğinden klonlanmış embriyolar elde etmeye yönelik bir metodoloji sunmaktadır.
Giriş
Cervidae ailesi şu anda, her iki cinsin de boynuzlara sahip olduğu ren geyiği (Rangifer tarandus)1 ve hiçbir cinsin boynuzlara sahip olmadığı Çin su geyiği (Hydropotes inermis)2 istisnaları dışında, erkeklerin kafataslarının üst kısmında açıkta bulunan kemikli yapılar olan gerçek boynuzlara sahip 55 tırnaklı memeli türünü kapsamaktadır. Cervid'ler; pronghorn, bovid'ler, domuzlar, taiassuid'ler, develer, tang'ler, zürafalar ve hipopotam ailelerini de içeren Cetartiodactyla takımına aittir. Genel olarak cervid'ler, Antarktika kıtası hariç, dünya genelinde çok çeşitli habitatlarda yaşayan herbivor ruminantlardır3.
Brezilya'da şu anda Cervidae ailesine ait dokuz tür tanınmaktadır: Odocoileus virginianus (beyaz kuyruklu geyik), Blastocerus dichotomus (bataklık geyiği), Ozotoceros bezoarticus (pampas geyiği), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira ve Passalites nemorivagus4.
Bu taksonomi, Mazama cinsinin polifiletik olduğunu gösteren ve Subulo6 ile Passalites'in7 ayrı geçerli cinsler olarak kabul edilmesine yol açan güncel moleküler çalışmaları yansıtmaktadır5. Bu Neotropikal geyiklerin çoğu; habitat kaybı, peyzaj fragmantasyonu ve popülasyon izolasyonu ile ilişkili genetik çeşitlilikteki azalma dahil olmak üzere antropojenik baskılar nedeniyle giderek daha fazla tehdit altına girmektedir8.
Son 100 yıl boyunca, yardımcı üreme teknikleri önce laboratuvar memelilerinde başarıyla uygulanmış ve ardından kademeli olarak yüksek koruma önceliğine sahip vahşi türlere aktarılmıştır9. Sonuç olarak, üreme biyoteknolojilerinin büyük çoğunluğu memeli modelini kullanarak gelişmiş ve bu nedenle bu grup, araştırmaların merkezinde yer almıştır. Suni tohumlama, embriyo transferi, in vitro fertilizasyon, gamet ve embriyo cinsiyetlemesi ve genetik kaynakların kriyoprezervasyonu dahil olmak üzere çeşitli üreme teknolojileri memelilere başarıyla adapte edilmiştir10. Bununla birlikte, özellikle somatik hücre nükleer transferi (SCNT) tekniği, elde edilen sonuçlar ve nesli tehlike altındaki türlerde kullanıldığında yaratabileceği potansiyel etki nedeniyle diğerlerinden ayrılmıştır11.
Mevcut üreme biyoteknolojileri arasında klonlama, donör hayvanla genetik olarak özdeş bireylerin üretilmesine olanak tanır. Klonlama için kullanılan temel strateji, bir somatik hücre çekirdeğinin enükle edilmiş bir oosite aktarıldığı somatik hücre çekirdek transferidir (SCNT). Ancak, yaban hayatı türleri bağlamında bu yöntemin uygulanması, sıklıkla oosit donörlerinin kıtlığı ve oosit geri kazanımıyla ilgili teknik zorluklar nedeniyle sınırlanmaktadır12. Bu kısıtlamalar, koruma programlarında tamamlayıcı bir yaklaşım olarak, evcil hayvanlardan elde edilen oositlerin, nesli tehlike altındaki türlerden türetilen çekirdekler için alıcı sitoplazmalar olarak kullanıldığı türler arası somatik hücre çekirdek transferinin (iSCNT) geliştirilmesine yol açmıştır (Şekil 1). Bu yaklaşımın uygulanabilirliği, iSCNT kullanılarak birkaç yaban türünden canlı yavruların başarıyla üretilmesiyle kanıtlanmıştır13,14,15.
Oositlerin ve donör hücrelerin nasıl manipüle edildiğine bağlı olarak, klonlanmış embriyoların üretimi için farklı stratejiler önerilmiştir. Geleneksel yaklaşımda, sağlam bir zona pellucida'ya sahip oositler enükle edilir ve ardından donör hücre perivitellin boşluğa yerleştirilerek elektrofüzyon ile birleştirilir16. Bir diğer olasılık ise, mikroenjeksiyon gibi mikromanipülasyon teknikleri kullanılarak somatik çekirdeğin zona ile çevrili bir oosite doğrudan enjekte edilmesidir17. Buna karşılık, zona pellucida'dan arındırılmış (ZP-free) sistemler, enükleasyonun karmaşık ekipmanlara ihtiyaç duyulmadan küt uçlu bir pipetle gerçekleştirilebilmesi sayesinde birçok mikromanipülasyon adımını ortadan kaldırarak klonlama prosedürünü basitleştirir18. Bu deneyde, sığır sitoplastı ve geyik karyoplastı kullanarak klonlanmış embriyolar elde etmek amacıyla iSCNT sırasında ZP-free oositlerin sitoplast olarak kullanılmasını öneriyoruz.
Protokol
Yetişkin bir dişi kırmızı brocket geyiği, çevresel yetkililer tarafından Guaramiranga, Ceará, Brezilya'da (4°13'53.0'' S, 38°56'42.6'' W) ele geçirilmiştir. Hayvan, Fortaleza, Brezilya'daki Ceará Eyalet Üniversitesi (UECE) Neotropikal Geyiklerin Korunması Laboratuvarı'na (LACCERNE) ölü olarak getirilmiştir. Nekropsiy findings, ölümün sol dorsolateral abdominal bölgeden giren bir ateşli silah mermisinin neden olduğu çoklu travmatik yaralanmalardan kaynaklandığını göstermiştir. Bu örneğin kullanımı, Ceará Eyalet Üniversitesi Hayvan Deneyleri Etik Kurulu (CEUA-UECE, protokol numarası 450620/2022) ve Brezilya Çevre ve Yenilenebilir Doğal Kaynaklar Enstitüsü (IBAMA, protokol numarası 02027.014734/99-34) tarafından onaylanmıştır. Ayrıca, sığır yumurtalıklarının kullanımı CEUA/UECE tarafından onaylanmıştır (protokol numarası 31032.004671/2024-81). Kullanılan tüm reaktiflerin ve ekipmanların ayrıntıları Malzeme Tablosu'nda listelenmiştir. Bu çalışmayı destekleyen verilere Zenodo üzerinden 10.5281/zenodo.22129414 DOI numarası ile erişilebilir.
1. Çözeltiler ve kültür ortamları
NOT: Tüm filtreleme işlemlerini 0.22 µm steril filtre üzerinden gerçekleştirin ve süzüntüyü 4 °C'de bir haftaya kadar saklayın. Stok çözeltiyi -20 °C'de saklayın.
- Taşıma medyumu: 8,1 g NaCl ve 0,045 g pentabiyotik ekleyin ve distile su ile 900 mL'ye tamamlayın.
- Fosfat tamponlu salin (PBS): 0,4 g NaCl, 0,01 g KCl, 0,077 g NaH2PO4 ve 0,01 g KH2PO4 ekleyin ve ultrapure su ile 50 mL'ye tamamlayın.
- Hücre kültürü medyumu: %10 (v/v) fetal bovine serum (FBS) ve %1,0 (v/v) penisilin, streptomisin ve amfoterisin B çözeltisi (ATB) ile takviye edilmiş Dulbecco's Modified Eagle Medium (DMEM).
- Fibroblast kriyoprezervasyon çözeltisi: %10 (v/v) FBS, %10 (v/v) dimetil sülfoksit (DMSO) ve %2,0 (v/v) ATB çözeltisi ile takviye edilmiş DMEM.
- Trypsin-EDTA (%0,25).
- Manipülasyon medyumu: Albümin, laktat ve piruvat içeren HEPES tamponlu Tyrode medyumu (H-TALP). İnkübatör dışında gerçekleştirilen tüm prosedürler için bu medyumu kullanın. 1 L için, 981,86 mL steril embryo test suyuna 6,763 g NaCl, 0,239 g KCl, 0,294 g CaCl2·2H2O, 0,048 g MgCl2, 0,168 g NaHCO3 ve 3,575 g HEPES ekleyin. Çalkalayın ve 10 mL antibiyotik–antimikotik, 1 mL fenol kırmızısı, 1,44 mL sodyum laktat, 1 mL 100 mM sodyum piruvat stok çözeltisi ve 3 g bovine serum albumin (BSA) ekleyin. Ozmolaliteyi 280 mOsm ve pH'ı 7,2 ile 7,4 arasına ayarlayın. 50 mL'lik alikotlara bölün ve bir ay boyunca 4 °C'de saklayın.
- In vitro maturasyon medyumu: %10 (v/v) FBS, 10 ng/mL epidermal büyüme faktörü (EGF), 1 mM sodyum piruvat, 100 µM sistamin, 10 µg/mL folikül uyarıcı hormon (FSH), 1 µg/mL östradiol ve %1 (v/v) ATB ile takviye edilmiş Medium 199 (TCM-199). pH'ı 7,2–7,4'e ayarlayın.
- Hyaluronidaz çözeltisi (final konsantrasyon: 1 mg/mL): 10 mg hyaluronidazı 10 mL H-TALP içinde çözün. 1,5 mL'lik tüplerde kullanıma hazır 200 µL'lik alikotlar hazırlayın.
- Pronaz çözeltisi (final konsantrasyon: 1,5 mg/mL): 15 mg pronazı 10 mL H-TALP içinde çözün. 1,5 mL'lik tüplerde kullanıma hazır 200 µL'lik alikotlar hazırlayın.
- Demekolsin (final konsantrasyon: 0,4 µg/mL): 5 mg demekolsini (DMC) 125 µL DMSO içinde çözün ve 5 µL'lik alikotlar (stok çözelti) hazırlayın. Alikotları kullanıma kadar dondurun. Çalışma stok çözeltisini elde etmek için 2 µL stok çözeltiyi 1998 µL TCM ile karıştırarak seyreltin. Kullanmadan önce, 495 µL sentetik ovidukt sıvısına (SOF) 5 µL çalışma stok çözeltisi ekleyin.
- Hoechst (final konsantrasyon: 10 µg/mL): 1 mg/mL Hoechst 33342'yi H-TALP içinde çözün. 5 µL'lik alikotlar ve SOF kültür medyumu içinde 1:100 seyreltmeler hazırlayın.
DİKKAT: Nükleer DNA'yı UV ışığı altında görselleştirmek için kullanılan Hoechst 33342, bir interkalasyon ajanıdır ve güçlü bir mutajendir. Uygun kişisel koruyucu ekipman ile kullanın. - Fitohemaglutinin (final konsantrasyon: 1 mg/mL): 5 mg fitohemaglutini (PHA) 500 µL H-TALP içinde çözün. 200 µL'lik tüplerde 10 µL'lik alikotlar hazırlayın. Kullanmak için 90 µL H-TALP ekleyin.
- Hücre füzyon medyaları: Ultrapure su içinde 0,3 M mannitol, 0,1 mM MgSO4, 0,05 mM CaCl2, 0,5 mM HEPES ve 1 mg/mL polivinil alkol (PVA). Hazırlandığı gün kullanın.
- Ionomisin (final konsantrasyon: 5 µM): Ionomisin flakonuna (1 mg/flakon) 1 mL DMSO ekleyin. 1,67 mL TCM-199 ekleyin. 1,5 mL'lik tüplerde 10 µL'lik alikotları -20 °C'de dondurun. Kullanmak için her bir 1,5 mL'lik tüpün içeriğine 990 µL H-TALP ekleyin. Işıktan koruyun.
- 6-Dimetilaminopürin (final konsantrasyon: 2 mM): 10 mg 6-dimetilaminopürini (6-DMAP) çözün. 1,5 mL'lik tüplerde 50 µL'lik alikotları -20 °C'de dondurun. Kullanmak için her bir 1,5 mL'lik tüpün içeriğine 950 µL SOF ekleyin.
- Embriyo kültürü medyumu: 0,2 mM L-glutamin, 0,2 mM sodyum piruvat, %2 esansiyel amino asitler Basal Medium Eagle (BME), %1 esansiyel olmayan amino asitler MEM 100×, %1,0 (v/v) ATB çözeltisi, 2,77 mM myo-inositol, %2,5 (v/v) FBS, 10 µL/mL ITS (insülin, human transferrin ve sodyum selenit karışımı) ve 3 g/L BSA.
2. Donör doku örneğinin toplanması ve manipülasyonu
- Donör dişinin kulağının yüzeyini sabun ve suyla yıkayıp tıraş edin; ardından bölgeyi alkol (%70) ile dezenfekte edin.
- Bir skalpel bıçağı ile küçük bir kulak örneği (1 × 2 cm) alın, bunu %4 ATB içeren bir PBS çözeltisine yerleştirin ve 4 °C'de tutarak laboratuvara nakledin.
- Biyopsi örneğini bir skalpel bıçağı kullanarak küçük parçalara ayırın ve kültür ortamı ile kaplanmış 35 mm'lik bir Petri kabına yerleştirin. %5 CO₂ içeren doymuş nem altında 38,5 °C'de kültüre edin.
- Kontaminasyonu önlemek için, hücreler konfluense ulaşana kadar kültür ortamını her 48 saatte bir değiştirin.
- Konfluens plakadaki kültür ortamını uzaklaştırın ve 35 mm'lik bir Petri kabına 2 dakika boyunca 1 mL %0,25 trypsin-EDTA ekleyin.
- Tripsini inaktive etmek için 2 mL hücre kültür ortamı ekleyin. Hücre süspansiyonunu 15 mL'lik bir tüpe aktarın ve oda sıcaklığında (≈ 25 °C) 10 dakika boyunca 200 x g hızında santrifüjleyin.
- Süpernatantı uzaklaştırın ve hücre peletini 10 mL kültür ortamı içinde yeniden süspande edin. Fibroblast kültürünü her 5 günde bir pasajlayın.
- Hücre peletini 1 mL kriyoprezervasyon çözeltisi içinde yeniden süspande ederek fibroblastları kriyoprezerve edin. Hücre süspansiyonunu kriyotüplere aktarın, bunları kontrollü hızda dondurma kabı içinde 18 saat boyunca -80 °C'de tutun ve ardından kullanıma kadar sıvı azot tankına (-196 °C) aktarın. Fibroblast kriyoprezervasyonunun ardından, hücre manipülasyonuna ara verilebilir ve yalnızca hücre döngüsü senkronizasyonu sırasında yeniden başlanabilir.
- Fibroblastları iSCNT için kullanmadan 1-2 hafta önce çözdürün ve kültüre edin.
3. Hücre döngüsü senkronizasyonu
- Hücre döngüsünü, konfluens aracılığıyla G0/G1 fazında senkronize edin.
- Konfluens plakadaki kültür ortamını uzaklaştırın ve 38,5 °C'deki CO₂ inkübatöründe 2 dakika boyunca 35 mm'lik Petri kabına 1 mL %0,25 tripsin-EDTA ekleyin. Tripsini inaktive etmek için 2 mL kültür ortamı ekleyin.
- Hücre süspansiyonunu 15 mL'lik bir tüpe aktarın ve 200 x g hızda 10 dakika boyunca santrifüjleyin.
- Süpernatantı uzaklaştırın ve hücre sedimentini iSCNT için 1-3 mL hücre kültür ortamında yeniden süspanse edin.
4. Oosit toplama
- Kesimden hemen sonra düve veya ineklerden bovine yumurtalıklarını toplayın ve 25-30 °C sıcaklıkta tutarak, içerisinde taşıma ortamı bulunan bir termosla laboratuvara nakledin.
- Yumurtalıkları kültür ortamı ile iki kez yıkayın ve 38.5 °C'deki bir su banyosundaki behere yerleştirin.
- H-TALP ortamı içeren 10 mL'lik bir şırıngaya takılı 18-gauge iğne kullanarak, çapı 2-8 mm olan foliküllerden foliküler sıvıyı aspire edin.
- Aspire edilen foliküler sıvıyı 50-mL'lik konik bir tüpe aktarın ve 38.5 °C'deki su banyosunda en az 15 dk bekletin.
5. Oosit olgunlaştırma ve denuding
- 15 dk sonra, tüm peleti plastik bir Pasteur pipeti kullanarak dikkatlice bir Petri kabına (100 × 15 mm) aktarın.
- En az üç kompakt kumulus hücresi tabakasına sahip olan ve I ile III arası derecelere (Tablo 1)19 karşılık gelen kumulus-oosit komplekslerini (KOK'lar) seçmek için bir stereomikroskop kullanın.
- KOK'ları üç kez yarı H-TALP ile ve ardından iki kez in vitro maturasyon ortamı ile yıkayın.
- Her bir 100 µL mineral yağ ile kaplı in vitro maturasyon ortamı damlasına 20-25 KOK aktarın. Bunları 38.5 °C'de, %5 CO₂ içeren bir atmosferde ve doygun nemde 20-22 saat inkübe edin.
- Hücreleri, 200 µL hyaluronidaz çözeltisi içinde 2 dk boyunca nazikçe pipetleyerek KOK kümesinden ayırın.
- Kumulus hücrelerinden arındırılmış oositleri 2 mL H-TALP ortamında yıkayın.
- Sonraki aşamalar için, bir stereomikroskop altında ilk polar cismin atılımını gösteren oositleri (metafaz II - MII) seçin.
6. Zona pellucida'nın uzaklaştırılması, enükleasyon ve zona pellucida'dan arındırılmış oositlerin yeniden yapılandırılması
- MII evresindeki oositleri 38,5 °C'de 1-2 dakika boyunca 100 µL'lik bir pronaz çözeltisi damlasında inkübe edin. Zona pellucida incelmeye başlayana kadar stereomikroskop altında gözlemleyin.
- Oositleri hemen geri alarak pronazı inaktive etmek için %20 FBS ile takviye edilmiş kültür ortamına yerleştirin.
- Zona pellucida'sız oositleri, DNA içeren bir sitoplazmik çıkıntı oluşturmak için 0,4 µg/mL demekolsin içeren SOF ortamında 20 dakika inkübe edin; ardından aynı ortamın 10 µg/mL Hoechst ile takviye edilmiş versiyonunda ikinci bir 20 dakikalık inkübasyon gerçekleştirin.
- Zona pellucida'sız oositleri H-TALP damlalarına transfer edin ve ters mikroskoba bağlı mikromanipülatörler kullanarak enükleasyon işlemini gerçekleştirin.
- Oositi tutma pipetinin yanına yerleştirin.
- Çıkıntı saat üç pozisyonuna gelene kadar oositi döndürün ve 25 µm'lik küt uçlu bir enjeksiyon pipeti kullanarak çıkıntıyı sitoplazmanın %5-10'u ile birlikte aspire edin.
- Aspire edilen sitoplazmayı ultraviyole ışık altında görüntüleyerek enükleasyonun başarılı olduğunu doğrulayın (Şekil 2).
UYARI: Oositlerin DNA boyaları ve ultraviyole ışığa maruz kalması genetik materyale zarar verir ve oksidatif stres oluşturur. Maruz kalma süresini minimumda tutun.
7. Hücre füzyonu
- Füzyon odasını bir stereomikroskop altında monte edin ve pH 7'de 2 mL füzyon medyumu ile doldurun.
- 60 mm'lik bir Petri kabında, beş adet 100-µL'lik ve bir adet 30-µL'lik H-TALP damlası hazırlayın ve 50 µL PHA ekleyin.
- 30 µL'lik H-TALP damlasına 5 µL fibroblast ekleyin, homojen ve refraktil hücreleri seçin ve bunları 100 µL'lik bir H-TALP damlasına aktarın.
- Enükle edilmiş oositleri 100 µL'lik bir H-TALP damlasına aktarın.
- Oositi 4 s boyunca PHA damlasına maruz bırakın, bir hücrenin üzerine yerleştirin ve ikisinin yapıştığını doğrulayın. Ardından kompleksi, içinde herhangi bir içerik bulunmayan bir TALP-H damlasına aktarın.
- Oosit ve hücre yapıştıktan sonra, çökelmelerine izin vermek için onları 2 mL füzyon medyumu içeren bir plakaya aktarın. Ardından, hücreyi saat altı veya on iki konumuna gelecek şekilde yerleştirerek kompleksi füzyon odasındaki elektrotların arasına koyun.
UYARI: Elektrofüzyon sırasında kullanılan aktivasyon tamponları, hücresel kalsiyum homeostazını bozan ionomycin içerir. Yüksek voltajlı elektrik alanları, ekipman ıslaksa veya yanlış kullanılırsa elektrik çarpması veya ark oluşumu riski taşır. - Füzyonu, 0.2 mm elektrot aralığına sahip bir mikrofüzyon odası kullanarak gerçekleştirin. Bir elektroporatör kullanarak, her biri 30 µs süren ve aralarında 0.1 s ara olan, 0.72 kV/cm'de iki tek yönlü doğru akım darbesinden oluşan tek bir darbe dizisi uygulayın.
- Darbe uyguladıktan sonra, her bir oosit-hücre çiftini tek tek %2.5 FBS ile desteklenmiş 5-µL'lik SOF mikrodamlalarına aktarın ve %5 CO₂ atmosferinde 38.5 °C'de kültüre edin.
- Füzyonu 30 dk sonra stereomikroskop altında tek tek değerlendirin.
- Füzyon gerçekleşmemiş yapıları ikinci bir füzyon turuna tabi tutun.
- Füzyon gerçekleşmiş kompleksleri zona pellucida'sı olmayan yeniden oluşturulmuş embriyolar olarak kabul edin ve aktivasyon gerçekleşene kadar (yeniden programlama süresi) 2 saat boyunca inkübe edin.
8. Oosit aktivasyonu ve embriyo kültürü
- Rekonstrükte edilen yapıları, 5 µM ionomycin içeren 100 µL H-TALP ortamı damlacıkları içinde 4 dk boyunca inkübe edin.
- Rekonstrükte edilen yapıları, dört adet 100 µL H-TALP ortamı damlacığı ile yıkayın.
- Rekonstrükte edilen yapıları, 2 mM 6-DMAP içeren 100 µL SOF ortamı damlacıkları içinde 3 sa boyunca inkübe edin.
- Rekonstrükte edilen yapıları, dört adet 100 µL SOF ortamı damlacığı ile yıkayın.
- 35 × 10 mm'lik bir Petri kabının tabanına hafifçe bastırılmış ısıtılmış bir cam kılcal boru kullanarak mikrokuyu plakaları oluşturun. Her biri 500 µm çapında ve 250 µm derinliğinde olmak üzere 20 ile 25 arasında mikrokuyu oluşturun20.
- Rekonstrükte edilen embriyoları modifiye mikrolit kuyuya tek tek yerleştirin, üzerlerini 100 µL SOF ortamı ile kaplayın ve son olarak 3 mL mineral yağı ile örtün. Mikroplakaları %5 CO₂, %5 O₂ ve %90 N₂ içeren tri-gaz inkübatörde 7 gün boyunca tutun.
Sonuçlar
Sonuçlar R yazılımı (v.4.5.2) kullanılarak analiz edildi. Bölünme ve blastokist oranları, çiftler arasında (geyik/sığır ve sığır/sığır) Fisher'ın kesin testi kullanılarak karşılaştırıldı. On tekrar gerçekleştirildi: dördü geyik/sığır çifti ve altısı sığır/sığır çifti şeklinde. Ayrıca, tüm analizler için anlamlılık düzeyi %5 olarak belirlendi.
Analiz sırasında, yerel bir mezbahadan temin edilen 472 sığır oositi sitoplast alıcıları olarak kullanılmıştır. Ancak, in vitro maturasyon ve ardından gelen elektrofüzyon sonrası, 73 yapı füzyona uğramamış ve sonraki aşamalardan hariç tutulmuştur; sonuç olarak 399 adet başarılı füzyon gerçekleşmiş karyoplast/sitoplast yapısı elde edilmiştir. Bu toplam içerisinden şu çiftler (karyoplast/sitoplast) kullanılmıştır: dört tekrarlı geyik/sığır (n = 175) ve altı tekrarlı sığır/sığır (n = 224) (Tablo 2).
iSCNT'nin etkisini değerlendirmek için, zona pellucida'dan arındırılmış yeniden yapılandırılmış embriyolar 7. güne kadar mikrokuyucuklarda kültüre edilmiştir. Zona pellucida içermeyen morula ve blastokistin temsilci mikrofotoğrafları Şekil 3'te gösterilmiştir.
Tablo 2, bu deneyde elde edilen bölünme ve blastokist oranlarını sunmaktadır. Bölünme oranı, gruplar (geyik/sığır ve sığır/sığır çiftleri) arasında anlamlı bir fark göstermemiştir (P = 0,74). Öte yandan, blastokist oluşum oranıyla ilgili olarak, tür içi klonlama grubunda daha yüksek bir yüzde ile istatistiksel bir fark (P=0,02) gözlemlenmiştir. Ancak, türler arası klon sayısının genellikle az olduğu bu tür deneyler için güç sınırlamasının vurgulanması önemlidir.
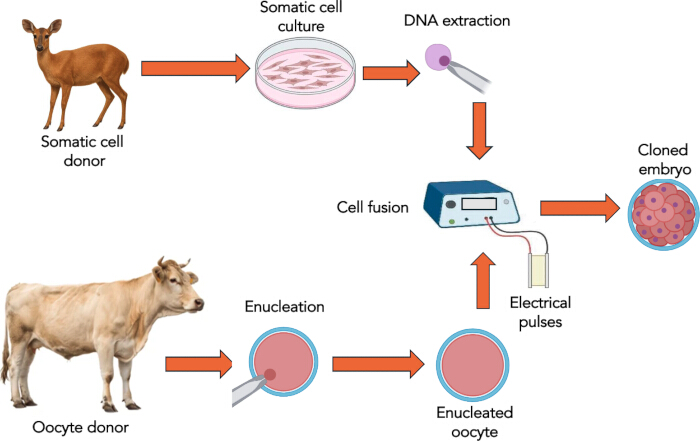
Şekil 1: Türler arası Somatik Hücre Çekirdek Transferinin şematik aşamaları. Sitoplast donörleri olarak inekler, karyoplast donörleri olarak ise geyikler kullanılır. Klonlanmış embriyo elde edildikten sonra, alıcı dişilere transfer edilebilir veya gelecekteki transfer işlemleri için kriyoprezerve edilebilir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
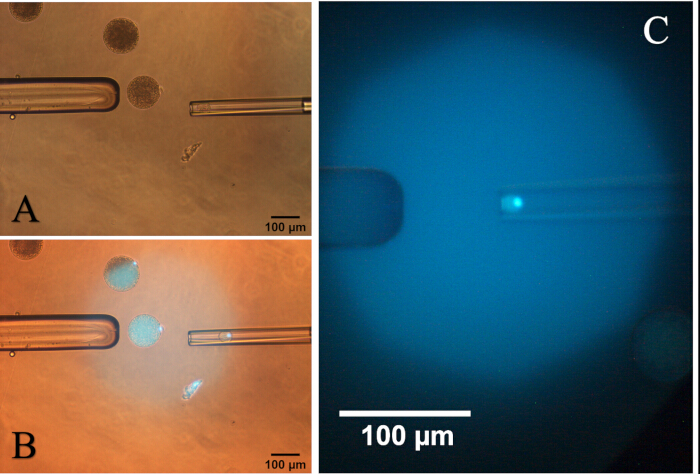
Şekil 2: Sitoplazma çıkıntısı olan aktive edilmiş oositin fotomikrografisi. (A) Çıkıntıyı saat üç yönüne getirmek için oositin döndürülmesi. (B) Ultraviyole ışık altında, sitoplazmanın %5-10'u ile birlikte çıkıntının aspire edilmesi. (C) Ultraviyole ışık altında aspirasyon pipetindeki sitoplazma ve çıkıntısı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
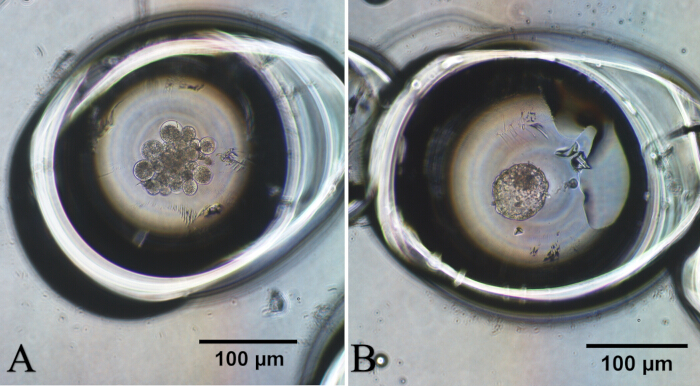
Şekil 3Türler arası Somatik Hücre Çekirdeği Transferi ile üretilen geyik embriyolarının fotomikrografisi. (A) Morula aşamasındaki klonlanmış embriyo. (B) Blastokist evresindeki klonlanmış embriyo. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
| Derece | Kumulus tabaka sayısı | Cumulus genişlemesi |
| I | > 3 | Birkaç sık ve hafif gevşek hücre tabakasına sahip tam kümülüs örtüsü |
| II | 2 - 3 | Dış hücre katmanlarında hafif genişleme |
| III | 1 | Kısmi kümülüs bulut örtüsü ve gevşek hücre katmanları |
| IV | 0 | Kumulus yok |
Tablo 1: Türler arası somatik hücre çekirdek transferi sırasında daha sonra enükle edilecek ve sitoplast olarak kullanılacak sığır oositlerinin sınıflandırılması (Aguila ve ark.'dan uyarlanmıştır)19.
| Gruplar (carioplast/sitoplast) | Tekrarlar sayısı | Yeniden yapılandırılan embriyo sayısı | Kesilen sayı (%) | Blastokist sayısı (%) |
| Geyik/Sığır | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| Sığır/Sığırlar | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Aynı sütundaki farklı harfler, istatistiksel bir fark olduğunu belirtir. | ||||
| Bölünme oranı: P = 0,74 | ||||
| Blastokist oranı: P = 0,02 | ||||
Tablo 2: Bovin sitoplast kullanılarak kırmızı brocket geyiği klonlanmış embriyolarının in vitro gelişimi.On tekrar gerçekleştirilmiştir: dörde geyik/sığır çifti ve altıya sığır/sığır çifti. Bölünme ve blastokist oranları, payda olarak yeniden yapılandırılmış embriyo sayısı kullanılarak hesaplanmıştır.
Tartışma
Tehlike altındaki türlerin genomunun, sitoplastların en büyük kaynağı olan çiftlik hayvanlarından, özellikle de sığır ve domuzlardan alınan oositler kullanılarak yeniden programlanabileceği halihazırda iyi belgelenmiştir21. iSCNT alanında elde edilen en büyük ilerlemelerden biri, bilinen son bireyinin ölümüyle yok olan bir alt tür olan Pireneler ibexinin (Capra pyrenaica pyrenaica) klonlanmasıydı. Yeniden yapılandırılan embriyolar, ibex epitelyal hücrelerinin keçi (Capra hircus) oositleri ile füzyonlanmasıyla elde edildi. Yazarlar, dışsal morfolojik anomalisi olmayan bir dişinin doğumunu gerçekleştirdi. Ancak, yavru şiddetli solunum yetmezliği gösterdi ve doğumdan birkaç dakika sonra öldü22.
“Yeniden canlandırma” için en güçlü adaylardan biri yünlü mamottur (Mammuthus primigenius). Klonlamanın mümkün olabilmesi için, tanımlanabilir çekirdeklere sahip canlı dokuların mevcut olması temel bir gerekliliktir; bu durum, yaklaşık 10.000 yıl önce yok olmuş bir tür için oldukça zordur. Buna rağmen, donmuş toprak tabakasında bulunan mamot bedenleri, iSCNT için minimum gereksinimleri karşılamaktadır23. Ancak, belki de bu teknikten yararlanmak için daha uygun adaylar nesli tükenme tehlikesi altındaki türlerdir.
Çalışmamızda gözlemlenen segmentasyon oranı, aktivasyonun ve ilk embriyonik bölünmenin, çekirdek ve sitoplazmanın türler arası kombinasyonundan etkilenmediğini göstermiştir. Rekonstrüksiyon aşamasında, yapıların (karyoplast/sitoplast) manipülasyonu ve füzyonu her iki grupta da aynı teknik kolaylığı göstermiş olup, bu durum türler arasında yapısal uyumluluğa işaret etmektedir. Blastokist oranıyla ilgili olarak sonuçlar, iSCNT embriyosunun rekonstrüksiyonu ve erken aktivasyonu kısıtlayıcı bir faktör olmasa da, muhtemelen eksik epigenetik yeniden programlama veya maternal-zigotik geçiş ile ilişkili olan ve hibrit embriyonun blastokist evresine ulaşma yeteneğini etkileyen, gelişimin daha sonraki aşamalarında kendini gösteren bir nükleer-sitoplazmik uyumsuzluk olduğunu düşündürmektedir24. iSCNT verimliliği, karyoplastlar ve sitoplastlar filogenetik olarak ilgili türlerden türetildiğinde daha yüksek olma eğilimindedir; çünkü canlı hibrit yavruların doğal üretimi, iki tür arasında bir dereceye kadar nükleositoplazmik uyumluluk olduğunu göstermektedir23. Bu nedenle, alt türler arası SCNT'nin sağlıklı yavrular üretebildiği halihazırda gösterilmiştir. Yazarlar, köpek sitoplastı ve kurt fibroblastı kullanmış ve embriyoları 12 dişiye transfer ederek bir yavrunun doğumunu sağlamışlardır25.
iSCNT kullanımı, donör çekirdek ile alıcı oosit arasındaki evrimsel mesafe arttıkça ciddi şekilde düşen biyolojik ve gelişimsel verimliliğindeki temel bir "güç sınırlaması" ile karşı karşıyadır. Birbirine yakın türler arasında (örneğin, evcil sığır ve gaur)26 başarılı olsa da, daha uzak taksonomik sınırlar aşılmaya çalışıldığında rutin olarak canlı yavrular veya stabil embriyonik hücre hatları üretmede başarısız olmaktadır.
Klonlama; genetik olarak üstün bireylerin çoğaltılmasına olanak tanıması, transgenik hayvanların üretilmesini desteklemesi ve gen bankaları aracılığıyla değerli genetik kaynakların uzun süreli korunmasına katkıda bulunması nedeniyle hayvan ıslahı ve koruma programları için önemli bir araç teşkil eder. Buna rağmen, hayvancılık ıslah programlarında klonlamanın benimsenmesi, transfer edilen embriyo sayısına oranla üretilen canlı hayvan sayısının düşük olması nedeniyle hala sınırlıdır18. Klonlanmış embriyo üretimine yönelik mevcut yaklaşımlar genellikle iki kategoriye ayrılır: konvansiyonel klonlama ve ZP-free klonlama. Konvansiyonel yaklaşımda, oosit çekirdeğini çıkarmak ve donör somatik hücreyi alıcı sitoplasta yerleştirmek için bir mikromanipülatör gereklidir26. Konvansiyonel klonlamanın aksine, ZP-free yöntemi mikromanipülasyon olmadan gerçekleştirilir27. Çalışmamızda elde edilen sonuçlar, gerek bölünme oranı gerekse blastokist üretimi açısından iSCNT kullanımıyla doğrulanan sonuçlarla oldukça benzerdi20,21.
Son olarak, bu prosedürün farklı adımları göz önünde bulundurulduğunda, kritik noktaların ve pratik sorun giderme yöntemlerinin vurgulanması önemlidir. ZP uzaklaştırmasıyla ilgili olarak, ZP'siz klonlama; operasyon kolaylığı, maliyet etkinliği ve transfer edilen embaryo başına nispeten daha yüksek canlı doğum oranı dahil olmak üzere çeşitli avantajlar sunar28. Ölümcül sitoplast hasarına yol açmadan tam nükleer uzaklaştırmanın (enükleasyon) onaylanması, yeniden oluşturulan yapının klonlanmış bir embriyoyu başarıyla destekleyip destekleyemeyeceğini belirler. UV maruziyetinin zararlı etkileri olduğu bilinmesine rağmen29, klonlama laboratuvarlarının çoğunluğunda rutin olarak kullanılmaktadır. Son olarak, ZP'siz embriyo kültürü koruyucu dış glikoprotein kabalıktan yoksun olduğundan, işlem sırasında yüksek fiziksel kırılganlık ve blastomer ayrışması gibi ciddi sorunlara yol açmaktadır30.
Sonuç olarak, çalışmamızda elde edilen sonuçlar, iSCNT protokolünün geyik/sığır kombinasyonundaki teknik fizibilitesinin ön kanıtları olarak yorumlanmalı, üretken etkinliğinin kesin kanıtı olarak görülmemelidir. Bu nedenle, bu bulguları doğrulamak için daha fazla tekrarlı ek çalışmalara ihtiyaç vardır.
Açıklamalar
Yazarların beyan edecekleri herhangi bir çıkar çatışması bulunmamaktadır.
Teşekkürler
Bu çalışma, Cearense Foundation for Scientific and Technological Development Support (FUNCAP, Fortaleza, Brezilya, hibe numarası 11212233/2022) ve National Institutes of Science and Technology (INCT/CNPq, hibe numarası 406866/2022-8) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Aspirasyon İğnesi (18G) | LABIMPORT | 353601 | Tek kullanımlık iğne, kısa kesim |
| 6-Dimetilaminopürin (6-DMAP) | Sigma-Aldrich | D2629 | |
| Antibiyotik–antimikotik | Gibco, Thermo Fisher Scientific | 15240062 | |
| Sığır serum albümini | Sigma-Aldrich | A9647 | |
| Kalsiyum Klorür Dihidrat (CaCl2·2H2O)·2H2O) | Sigma-Aldrich | C7902 | |
| T-25 Hücre Kültür Balonu | Corning | 430639 | |
| CellTram Mikroenjektör | Eppendorf | 5196 000.021 | |
| Santrifüj | Eppendorf | 5702 | Hücrelerin 200 g'de santrifüjlenmesi için kullanılır × nükleer transfer prosedürleri öncesinde örnekleri peletlemek ve yıkamak için 10 dakika boyunca santrifüj edin. |
| Santrifüj Tüpleri (50 mL) | Corning | CLS430291 | |
| Kriyotüpler (1,8 mL) | Nunc / Thermo Fisher | 368632 | |
| Sisteamin | Sigma-Aldrich | M9768 | |
| Demekolsin | Sigma-Aldrich | D1925 | |
| Distile su. | _ | _ | |
| DMSO (hücre dondurma) | Sigma-Aldrich | D2650 | Donör hücrelerin kriyoprezervasyonu için %10'luk kriyoprotektan |
| Dulbecco Modifiye Eagle Besiyeri (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| Enükleasyon Pipeti (20–25 µm Kimlik (ID) | Narishige | GD-1 | |
| Epidermal Büyüme Faktörü (EGF) | Sigma-Aldrich | E4127 | |
| Esansiyel amino asitler BME | Sigma-Aldrich | M5550 | |
| Estradiol | Sigma-Aldrich | E8875 | |
| EVE İnkübatör (%5 O2)2, %5 CO22%90 N2) | WTA tıbbi | REF. 23578 | |
| Fetal Bovine Serum (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| Filamanlı Cam Kılcal Boru | Narishige | GD-1 | Bu cam kılcal boru, petri kabında mikro kuyucuklar oluşturmak için kullanılır. |
| Isıtmalı Plaka | WTA tıbbi | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (DNA boyası) | Sigma-Aldrich | B2261 | |
| Tutma Pipeti (120 μm OD) | Narishige | GD-1 | |
| Hiyalüronidaz | Sigma-Aldrich | H4272 | |
| ECLIPSE Ters Mikroskop | Nikon | TE2000-U | |
| İyonomisin (Kalsiyum İyonoforu A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Isocide Laminer Akış Kabini | Esco | 2120765 | Embriyo ve hücre kültürü prosedürleri için steril bir çalışma ortamı sağlayan laminar akış kabini. |
| L-Glutamin | Sigma-Aldrich | G8540 | |
| Sıvı Azot Saklama Dewarı | Nitroagro | Değişkenlik gösterir | |
| Magnezyum Sülfat (MgSO4) | Sigma-Aldrich | M2643 | |
| Mannitol Füzyon Besiyeri (0,3M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microforge MF-900 | Narishige | MF-900 | |
| Mikromanipülatör Sistemi | Narishige | MM-89 / TransferMan 4r | |
| Mikropipet Çekici | Narishige | Narishige PC-100 | |
| Mikropipetler (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Araştırma Artı Serisi | |
| Mikrofüzyon Odacığı | Eppendorf | 12816532 | Elektroporasyon uygulamaları için tasarlanmış, 0,2 mm'lik özel bir boşluk aksesuarıdır |
| Mineral Yağı (embriyo testli) | Sigma-Aldrich | M8410 | |
| Multiporator | Eppendorf | 4308 000.015 | |
| Myo-inositol | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Esansiyel olmayan amino asitler içeren MEM | Sigma-Aldrich | M7145 | |
| Pentabiyotik | Zoetis | 10005048 | 2.400.000 IU'luk flakon. |
| 35 mm Petri Kabı (embriyo testli) | Corning | 430165 | |
| 60 mm Petri Kabı (embriyo testli) | Corning | 430196 | |
| Fenol kırmızısı | Sigma-Aldrich | P0290 | |
| Pipet Uçları 1000 µL | Eppendorf | 9401030 | |
| Pipet Uçları 200 µL | Eppendorf | 94052300 | |
| Filtresiz Pipet Uçları (0,5–10 µL) | Axygen | T-300 | |
| Poli(vinil alkol) (PVA) | Sigma-Aldrich | P8136 | |
| Pronaz (S. griseus kaynaklı proteaz) | Sigma-Aldrich | P8811 | |
| Sodyum laktat | Sigma-Aldrich | L7900 | |
| Sodyum piruvat | Sigma-Aldrich | P4562 | |
| Stereomikroskop | Nikon | SMZ800 | |
| Steril embriyo test suyu | Sigma-Aldrich | W3500 | |
| Steril filtre (0.22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Üç Gazlı İnkübatör (%5 O2)2, %5 CO₂2, %90 N2) | WTA tıbbi | REF. 23578 | |
| Tripsin-EDTA (%0,25) | Gibco / Thermo Fisher | 25200056 | |
| Ultrapure suáLütfen çevirmemi istediğiniz İngilizce metni sağlayın. | Sigma-Aldrich | W3500 | |
| UV Lamba / Floresan Modülü | Leica / Olympus | Değişkenlik gösterir | Enükleasyonu doğrulamak için kısa süreli UV maruziyeti; fototoksisiteyi minimize edin |
Kaynaklar
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Yeniden basım ve izinler
Bu makale yayımlandı
Video yakında