Bu çalışma, Cordyceps sinensis bileşenleri ile kronik glomerulonefrite ilişkili süreçler arasındaki aday bileşik-hedef ilişkilerini değerlendirmek için ağ farmakolojisini, doğrulanmış moleküler kenetlenmeyi ve in vitro deneyleri entegre etmektedir. Bileşik düzeyinde doğrulama için β-Sitosterol seçilmiş ve mezanjiyal hücre modellerinde inflamatuar ve profibrotik aktivasyonu hafiflettiği belirlenmiştir.
Yöntem makalesi
Kronik Glomerulonefrit ile İlgili İnflamatuar ve Profibrotik Mezangiyal Hücre Modellerinde β-sitosterolün Ağ Rehberli Değerlendirmesi
* These authors contributed equally
Bu makalede
Özet
Özet
Kronik glomerulonefrit (CGN), kalıcı inflamatuar hasar ve progresif fibrotik yeniden şekillenme ile karakterize edilir, ancak doğal ürün tabanlı müdahalelerin temelindeki bileşik-hedef ilişkileri henüz tam olarak tanımlanmamıştır. Bu çalışma, Cordyceps sinensis (C. sinensis) bileşen adaylarının CGN ile ilişkili patolojik süreçlerdeki etkilerini değerlendirmek için ağ farmakolojisi, doğrulanmış moleküler kenetleme ve in vitro deneyleri entegre etmiştir. C. sinensis bileşen adayları taranmış ve Geleneksel Çin Tıbbı Sistemler Farmakolojisi Veritabanı ve Analiz Platformu'ndan türetilen bileşik ilişkili hedefler, CGN ile ilişkili genlerle kesiştirilmiştir. Biyolojik süreçleri ve merkez hedefleri önceliklendirmek için fonksiyonel zenginleştirme ve protein-protein etkileşim analizleri kullanılmıştır. PTGS2 temel örtüşen hedef olarak belirlenmiştir. Moleküler kenetleme, celecoxib bağlı bir COX-2 yapısı kullanılarak gerçekleştirilmiştir. Birlikte kristalize edilmiş celecoxib ligandının yeniden kenetlenmesi, 0.876 Å'lik bir RMSD ile kristalografik pozu yeniden üretmiş ve böylece kenetleme protokolünü desteklemiştir. β-Sitosterol ve linoleyl asetat, sırasıyla −7.2 ve −7.5 kcal/mol bağlanma afiniteleri ile COX-2 kenetleme bölgesiyle öngörülen bir uyumluluk göstermiştir. HBZY-1 sıçan glomerüler mezangiyal hücrelerinde bileşik düzeyinde doğrulama için β-Sitosterol seçilmiştir. 0.5–10 µM konsantrasyonlarda, β-sitosterol hücre canlılığını belirgin şekilde azaltmamıştır. Lipopolisakkarit (LPS) ile stimüle edilen hücrelerde β-sitosterol; Tnf, Il6 ve Ptgs2 ekspresyonunu azaltmış, prostaglandin E2 (PGE2) üretimini düşürmüş ve siklooksijenaz-2 (COX-2) protein bolluğunu azaltmıştır. Transforme edici büyüme faktörü β1 (TGF-β1) ile işlem görmüş hücrelerde β-sitosterol, Col1a1 ve Acta2 ekspresyonunu azaltmış ve alfa-düz kas aktini (α-SMA) protein bolluğunu düşürmüştür. Bu bulgular, β-sitosterolün mezangiyal hücre modellerinde inflamatuar ve profibrotik aktivasyonu modüle ettiğine dair hipotez oluşturucu kanıtlar sağlamaktadır; ancak doğrudan COX-2 enzimatik inhibisyonunu veya CGN'de terapötik etkinliği kanıtlamamaktadır.
Giriş
Kronik glomerulonefrit (CGN), kronik böbrek hastalığına ve son evre böbrek hastalığına ilerleyebilen heterojen bir glomerüler bozukluklar grubunu kapsar1. Kalıcı glomerüler hasar, inflamatuar aktivasyon ve progresif fibrotik yeniden şekillenme ile karakterizedir2,3. Seçilmiş hastalarda kortikosteroidler ve immünosüpresif ajanlar kullanılsa da, birçok vakada uzun süreli hastalık kontrolü zor olmaya devam etmekte ve tedaviyle ilişkili yan etkiler yaygın görülmektedir1,4,5. CGN'nin ilerlemesi; immün aktivasyon, endotelyal disfonksiyon, oksidatif stres ve ekstraselüler matris birikimi dahil olmak üzere etkileşim halindeki patolojik süreçleri içerir3,6,7. Bu nedenle, inflamatuar ve profibrotik yanıtları birbirine bağlayan moleküler düğümlerin belirlenmesi, hastalıkla ilgili müdahale stratejileri için test edilebilir hipotezler üretilmesine yardımcı olabilir.
Cordyceps sinensis (C. sinensis), böbrekle ilgili klinik ve deneysel bağlamlarda kullanılmış olup çeşitli hastalık modellerinde anti-inflamatuar, anti-apoptotik ve sitoprotektif etkiler gösterdiği bildirilmiştir8,9,10. Ancak, aday bileşenlerinin glomerulonefrit ile ilgili hedeflerle etkileşime girme mekanizmasının moleküler temeli henüz yeterince tanımlanmamıştır11. C. sinensis'in çok bileşenli yapısı ve CGN'nin mekanistik heterojenliği göz önüne alındığında, ağ farmakolojisi, aday bileşik-hedef-yolak ilişkilerini önceliklendirmek için kullanışlı bir çerçeve sunmaktadır12,13.
Bu çalışmada, C. sinensis'in aday bileşenleri ile CGN ile ilişkili patolojik süreçler arasındaki potansiyel moleküler ilişkileri keşfetmek için bileşik tarama, hedef belirleme, hastalık-gen kesişim analizi, fonksiyonel zenginleştirme, protein-protein etkileşim ağı analizi, moleküler kenetleme ve in vitro doğrulama entegre edilmiştir. Bileşik-hastalık ağından merkez bir hedef olarak önceliklendirilen Prostaglandin-endoperoksit sentaz 2 (PTGS2), redocking doğrulamasıyla birlikte celecoxib bağlı siklooksijenaz-2 (COX-2) yapısı kullanılarak moleküler kenetleme ile değerlendirilmiştir. Ağ sonuçlarına, kenetleme analizine ve anti-inflamatuar ile anti-fibrotik aktiviteye dair önceki kanıtlara dayanarak, alt doğrulama için temsili bir aday bileşik olarak β-sitosterol seçilmiştir14,15,16. İnflamatuar aktivasyonu ve COX-2/prostaglandin E2 (PGE2) ile ilişkili yanıtı değerlendirmek için lipopolisakkarit (LPS) ile stimüle edilmiş mezanjiyal hücreler kullanılırken, profibrotik marker ekspresyonunu değerlendirmek için transforme edici büyüme faktörü β1 (TGF-β1) ile indüklenmiş bir model dahil edilmiştir.
Protokol
Ağ farmakolojisi ve biyoinformatik analizleri, halka açık veri tabanlarına dayandırılmış olup insan katılımcıları veya hayvanları kapsamamıştır. in vitro deneyler, yerleşik bir hücre hattı kullanılarak gerçekleştirilmiş olup kurumsal gerekliliklere göre etik onay gerektirmemiştir.
Aday bileşen taraması ve hedef geri kazanımı
Aday bileşenler ve bunlara karşılık gelen hedefler, 13 Temmuz 2025 tarihinde “dongchongxiacao” arama terimi kullanılarak Geleneksel Çin Tıbbı Sistem Farmakolojisi Veri Tabanı ve Analiz Platformu'ndan (TCMSP) elde edilmiştir. Tahmin edilen oral biyoyararlanımı en az %30 ve ilaç benzerliği en az 0,18 olan bileşiklerle çalışılmıştır. Yedi aday bileşen her iki tarama kriterini de karşılamıştır. Tanımlayıcı karşılaştırma için molekül ağırlığı, oral biyoyararlanım, ilaç benzerliği ve mevcut diğer farmakokinetik tanımlayıcılar TCMSP'den kaydedilmiştir.
Elde tutulan bileşenlerle ilişkili bileşik-hedef bilgileri doğrudan TCMSP'den indirilmiştir. Tekrarlanmayan hedef seti oluşturulurken yinelenen hedef girişleri manuel olarak kaldırılmış, ancak orijinal bileşik-hedef ilişkileri sonraki ağ inşası için korunmuştur. TCMSP'nin hedef isimlerini standartlaştırılmış gen sembolleri yerine tam uzunluktaki formlarında sunması nedeniyle, her bir hedef UniProt veri tabanında (14 Temmuz 2025 tarihinde erişilen) aranmıştır. İlgili insan girişi seçilmiş ve hedef adı resmi gen sembolüne dönüştürülmüştür. Standartlaştırılmış bileşik-hedef veri seti, hastalık-hedef kesişimi ve bileşik-hedef ağ analizi için kullanılmıştır.
Glomerülonefrit ile ilişkili genlerin toplanması ve hedef kesişimi
Hastalıkla ilişkili genler; GeneCards, DisGeNET, PharmGKB ve Therapeutic Target Database veritabanlarından 14 Temmuz 2025 tarihinde “glomerulonephritis” arama terimi kullanılarak elde edilmiştir. GeneCards için, 10 olan medyan skorun üzerindeki ilgili kayıtlar tutulmuştur. Diğer veritabanlarından uygun kayıtlar, küratörlü hastalık-hedef açıklamalarına göre dahil edilmiştir. Gen isimleri resmi insan gen sembollerine göre standart hale getirilmiş ve mükerrer kayıtlar çıkarılmıştır. Bu prosedür sonucunda 1.134 benzersiz glomerulonefrit ilişkili gen elde edilmiştir. Arama işleminde daha geniş bir terim olan “glomerulonephritis” kullanıldığı için, ortaya çıkan veri setinin tek bir histopatolojik alt tiple sınırlı olmaktan ziyade, kronik glomerulonefrit ilişkili moleküler süreçlerle ilgili olduğu değerlendirilmiştir.
TCMSP kaynaklı bileşikle ilişkili hedefler, R kullanılarak hastalıkla ilişkili gen setiyle kesiştirildi. Yirmi üç örtüşen hedef belirlendi. Venn diyagramları R'nin venn paketi kullanılarak oluşturuldu ve bileşik-örtüşen hedef ağı Cytoscape kullanılarak kuruldu ve görselleştirildi. Aday bileşenler ve örtüşen hedefler arasındaki ilişkiler Tablo 1'de özetlenmiştir.
Fonksiyonel zenginleştirme ve protein-protein etkileşim analizleri
Gen Ontolojisi (GO) ve Kyoto Gen ve Genom Ansiklopedisi (KEGG) zenginleştirme analizleri, R programında clusterProfiler ve org.Hs.eg.db kullanılarak gerçekleştirilmiştir. Gen Ontolojisi terimleri; biyolojik süreç, hücresel bileşen ve moleküler fonksiyon kategorilerinde analiz edilmiştir. P değerleri, Benjamini-Hochberg yöntemi kullanılarak çoklu testler için düzeltilmiş ve düzeltilmiş P değerleri 0,05'in altında olan terimler veya yolaklar tutulmuştur. Zenginleşmiş terimler ve yolaklar, bağımsız olarak oluşturulan sütun grafikleri ve nokta grafikleri kullanılarak görüntülenmiştir.
Çakışan 23 hedef, organizma olarak Homo sapiens seçilerek ve 0,4'ten büyük bir minimum etkileşim skoru belirlenerek STRING'e yüklendi. Elde edilen protein-protein etkileşim ağı Cytoscape'e aktarıldı. Ağ topolojisi; derece, arasındalık, yakınlık, özvektör merkeziliği, yerel ortalama bağlanabilirlik ve ağ merkeziliğine dayalı olarak CytoNCA kullanılarak değerlendirildi. Hub hedefler; derece, arasındalık merkeziliği, yakınlık merkeziliği, özvektör merkeziliği, yerel ortalama bağlanabilirlik ve ağ merkeziliği değerlerinin tamamı, ağın ilgili medyan değerlerinden daha yüksek olan düğümler olarak tanımlandı. Bu analiz, sonraki yorumlamalar için dokuz hub hedefi önceliklendirdi.
Moleküler kenetlenme ve yeniden kenetlenme doğrulaması
Moleküler kenetleme, celecoxib bağlı siklooksijenaz-2 yapısı olan PDB ID 3LN1 kullanılarak gerçekleştirilmiştir. Reseptör hazırlığı sırasında A zinciri ve ilişkili hem grubu reseptör olarak tutulurken, kristalografik su molekülleri ve birlikte kristalleşmiş celecoxib ligandı uzaklaştırılmıştır. Yeniden kenetleme doğrulaması için doğal celecoxib konformasyonu A zincirinden ayrı olarak çıkarılmıştır. AutoDockTools kullanılarak polar hidrojen atomları ve Gasteiger yükleri eklenmiş ve reseptör PDBQT formatında kaydedilmiştir. PDB ID 3LN1, celecoxib'e bağlı fare COX-2'nin 2.40 Å çözünürlükteki yapısıdır. β-sitosterol ve linoleil asetat yapıları PubChem'den alınmış ve Open Babel kullanılarak hazırlanmıştır. Hidrojen atomları ve Gasteiger kısmi yükleri eklenmiş, dönebilir bağlar atanmış ve her bir ligand PDBQT formatına dönüştürülmüştür. Celecoxib, β-sitosterol ve linoleil asetat, aynı reseptör ve arama parametreleri kullanılarak AutoDock Vina ile kenetlenmiştir.
Kenetleme kutusu, şu koordinatlar kullanılarak doğal selekoksib-bağlanma bölgesine merkezlendi: center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. Kapsamlılık (exhaustiveness) değeri 16, çıktı modlarının sayısı 10 ve enerji aralığı 3 kcal/mol olarak belirlendi. En düşük tahmin edilen bağlanma enerjisine göre en üst sırada yer alan poz, görselleştirme için saklandı. Protokol doğrulaması için doğal selekoksib aynı koşullar altında yeniden kenetlendi ve kristalografik poz ile yeniden kenetlenen poz arasındaki ağır atom kök ortalama kare sapması (RMSD) PyMOL kullanılarak hesaplandı. 2 Å altındaki bir kök ortalama kare sapma, referans pozun kabul edilebilir bir reprodüksiyonu olarak değerlendirildi. Kenetlenen her ligandan 4 Å mesafede bulunan kalıntılar PyMOL'de tanımlandı. Kenetleme skorları ve pozlar, yapısal uyumluluğun tahminleri olarak yorumlandı; hedef bağlanmasının veya enzimatik inhibisyonun doğrudan kanıtı olarak değerlendirilmedi.
Hücre kültürü ve bileşik hazırlama
HBZY-1 sıçan glomerüler mezanjiyal hücreleri, %10 fetal bovine serum ve %1 penicillin-streptomycin ile desteklenmiş yüksek glikozlu Dulbecco’s modified Eagle ortamında, 37 °C'de, nemli koşullar altında ve %5 CO₂ ile kültüre edildi. Tüm deneyler için 2–7 pasajlarındaki hücreler kullanıldı ve kullanım öncesinde mikoplazma içermediği doğrulandı. β-Sitosterol ve celecoxib, kimyasal olarak tanımlanmış bileşikler olarak kullanıldı. β-Sitosterol, 10 mM'lık bir stok çözelti (yaklaşık 4,15 mg/mL) oluşturmak için mutlak etanolden çözüldü. Gerektiğinde, görsel olarak berrak bir çözelti elde etmek için kısa süreli sonikasyon ve 50–60 °C'ye ısıtma işlemleri uygulandı. Celecoxib, 10 mM'lık bir stok çözelti (yaklaşık 3,81 mg/mL) hazırlamak için dimetil sülfokside çözüldü. Stok çözeltiler alikotlara ayrıldı ve −20 °C'de saklandı. İşlemden önce, stoklar önceden ısıtılmış kültür ortamına doğrudan seyreltildi ve hemen karıştırıldı.
Taşıyıcı konsantrasyonları her bir deney içinde eşleştirilmiştir. Hücre canlılığı analizinde, test edilen en yüksek β-sitosterol konsantrasyonu 20 µM olduğu için tüm gruplarda nihai etanol konsantrasyonu %0.2 v/v olarak ayarlanmıştır. LPS kaynaklı inflamasyon deneyinde, tüm gruplarda nihai etanol ve dimetil sülfoksit konsantrasyonları sırasıyla %0.1 ve %0.01 v/v olarak ayarlanmıştır. TGF-β1 kaynaklı profibrotik deneyinde, tüm gruplarda nihai etanol konsantrasyonu %0.1 v/v olarak ayarlanmıştır. Kontrol, LPS ve TGF-β1 gruplarına ilgili taşıyıcıların eşdeğer hacimleri eklenmiştir.
Hücre canlılık analizi
Hücreler, 96 kuyucuklu plakalara kuyucuk başına 100 µL tam besiyeri içinde 5 × 10³ hücre yoğunluğunda ekilmiş ve 24 sa boyunca tutunmaya bırakılmıştır. β-sitosterol konsantrasyon aralığını değerlendirmek için hücreler 0,5, 1, 5, 10 veya 20 µM β-sitosterol ile 24 sa boyunca inkübe edilmiştir. LPS ile ilişkili hücre canlılığı analizi için hücreler önce 1, 5 veya 10 µM β-sitosterol ile 2 sa boyunca ön işlemden geçirilmiş, ardından ek 24 sa boyunca 1 µg/mL lipopolisakkaride maruz bırakılmıştır.
Tedavi grupları Kontrol, 0,5 µM β-sitosterol, 1 µM β-sitosterol, 5 µM β-sitosterol, 10 µM β-sitosterol, 20 µM β-sitosterol, LPS, LPS artı 1 µM β-sitosterol, LPS artı 5 µM β-sitosterol ve LPS artı 10 µM β-sitosterol olarak belirlendi. Kuyu başına 10 µL Cell Counting Kit-8 reaktifi eklendi ve plaklar 2 s boyunca inkübe edildi. Ardından 450 nm'de absorbans kaydedildi. Hücre canlılığı, hücre içermeyen boş kontrol çıkarıldıktan sonra belirlendi ve Kontrol grubuna göre ifade edildi. Her koşul, altı bağımsız biyolojik deneyin her birinde altı teknik kuyu içeriyordu. İstatistiki analiz için tek bir biyolojik replika değeri oluşturmak amacıyla, her deneyden elde edilen teknik kuyu değerlerinin ortalaması alındı.
LPS ile indüklenen inflamatuar aktivasyon
İnflamatuar aktivasyon deneyleri için, HBZY-1 hücreleri 6 kuyucuklu plaklara kuyucuk başına 2 × 10⁵ hücre yoğunluğunda ekildi ve yaklaşık %70%–80% konfluense ulaştıktan sonra işlem gördü. Hücreler, işlemden önce 12 sa boyunca %1 fetal bovine serum ile desteklenmiş ortamda tutuldu. β-Sitosterol veya celecoxib, LPS stimülasyonundan 2 sa önce uygulandı. Ardından hücreler 24 sa boyunca 1 µg/mL LPS'ye maruz bırakıldı.
Deneysel gruplar Kontrol, β$\beta$-sitosterol ekleyin 10 µM, LPS, LPS artı β-sitosterol ekleyin 1 µM, LPS artısı β-sitosterol ekleyin 5 µM, LPS artı β-sitosterol at 10 µMve LPS artı celecoxib şeklinde 1 µMCOX-2 bağımlı prostaglandin üretiminin inhibisyonu için fonksiyonel bir pozitif kontrol olarak Celecoxib dahil edilmiştir. Tedavinin sonunda, PGE2 ölçümü için kültür süpernatantları toplanmıştır. Hücreler, şunların kantitatif gerçek zamanlı PCR analizi için ayrı olarak toplanmıştır: Tnf, Il6ve Ptgs2 ve COX-2'nin western blot analizi için.
TGF-β1 kaynaklı profibrotik aktivasyon
Profibrotik aktivasyonu değerlendirmek için ayrı bir TGF-β1-indüklenen model kullanılmıştır. HBZY-1 hücreleri, kuyuk başına 2 × 10⁵ hücre yoğunluğunda 6 kuyucuklu plakalara ekilmiş ve işlemden önce 12 sa boyunca %1 fetal bovine serum ile desteklenmiş ortamda tutulmuştur. Hücreler 2 sa boyunca β-sitosterol ile ön işlemden geçirilmiş, ardından 48 sa boyunca 10 ng/mL rekombinant TGF-β1 ile stimüle edilmiştir.
Tedavi grupları Kontrol, β-sitosterol (10 µM), TGF-β1, TGF-β1 + β-sitosterol (5 µM) ve TGF-β1 + β-sitosterol (10 µM) şeklinde düzenlenmiştir. Tedavi süresinin sonunda hücreler, Col1a1 ve Acta2 genlerinin kantitatif gerçek zamanlı PCR analizi ile alfa-düz kas aktinin (α-SMA) western blot analizi için toplanmıştır.
Kantitatif gerçek zamanlı PCR
Toplam RNA, üretici protokolüne uygun olarak fenol-guanidinyum bazlı bir RNA ekstraksiyon reaktifi kullanılarak işlem görmüş hücrelerden izole edildi. RNA konsantrasyonu ve saflığı bir spektrofotometre kullanılarak belirlendi. Ters transkripsiyon için yalnızca A260/A280 oranı 1,8–2,0 olan örnekler kullanıldı. Her örnek için 1 µg toplam RNA, 20 µL son reaksiyon hacminde tamamlayıcı DNA'ya ters transkribe edildi. Elde edilen tamamlayıcı DNA, kantitatif PCR öncesinde nükleaz içermeyen su ile beş kat seyreltildi. Kantitatif PCR; 10 µL 2× SYBR Green master mix, her birinden 0,4 µL 10 µM ileri ve geri primer, 2 µL seyreltilmiş tamamlayıcı DNA ve 7,2 µL nükleaz içermeyen su içeren toplam 20 µL hacimde gerçekleştirildi. Amplifikasyon koşulları, 95 °C'de 30 s boyunca başlangıç denatürasyon adımından sonra, 95 °C'de 5 s denatürasyon ve 60 °C'de 30 s bağlanma-uzama şeklinde 40 döngüden oluştu. Amplifikasyon özgüllüğünü doğrulamak için ardından 65 °C'den 95 °C'ye kadar bir erime eğrisi analizi yapıldı.
Ölçülen genler Tnf, Il6, Ptgs2, Col1a1, Acta2 ve Gapdh idi. Gapdh internal referans gen olarak kullanıldı. Bağıl gen ekspresyonu, Kontrol grubu kalibratör olarak kullanılarak 2−ΔΔCt yöntemiyle belirlendi. Primer dizileri Ek Tablo 1'de sunulmuştur. Her örnek teknik olarak üç tekrarlı analiz edildi ve altı bağımsız biyolojik deney gerçekleştirildi. Teknik tekrarlardan elde edilen değerler, istatistiksel analizden önce ortalaması alındı.
Enzim bağlı immünosorbent assay ile PGE2 ölçümü
Kültür süpernatantları 24 saatlik LPS stimülasyonunun ardından toplandı ve hücre kalıntılarını uzaklaştırmak için 4 °C'de 10 dakika boyunca 1,000 × g hızda santrifüj edildi. PGE2 konsantrasyonları, ticari olarak temin edilebilen bir enzim bağlı immünosorbent assay kiti kullanılarak üreticinin talimatlarına göre belirlendi.
Standartlar ve örnekler, analiz plağına ikişer kez (duplicate) yüklendi. Antikor bağlanma ve renk geliştirme aşamaları tamamlandıktan sonra, bir mikroplaka okuyucu kullanılarak 450 nm'de absorbans kaydedildi. PGE2 konsantrasyonları, dört parametreli lojistik standart eğrisinden belirlendi ve pg/mL olarak ifade edildi. Altı bağımsız hücre deneyinden elde edilen süpernatanlar analiz edildi. Her biyolojik örnek için yapılan çift ölçümler, istatistiksel analizden önce ortalandı.
Western blotting
İşlem görmüş hücreler, bir proteaz inhibitör karışımı ile desteklenmiş radyoimmünopresipitasyon analiz tamponunda lizlendi. Lizatlar buz üzerinde 30 dk boyunca inkübe edildi ve 4 °C'de 12,000 × g'de 15 dk boyunca santrifüj edildi. Süpernatantlardaki protein konsantrasyonları, bisinkoninik asit protein analizi kullanılarak belirlendi. Eşit miktarlarda protein (şerit başına 30 µg), yükleme tamponu ile karıştırıldı ve 95 °C'de 5 dk boyunca denatüre edildi. LPS deneylerinden elde edilen proteinler %10 sodyum dodesil sülfat-poliakrilamid jellerinde, TGF-β1 deneylerinden elde edilenler ise %12'lik jellerde ayrıştırıldı. Ayrıştırılan proteinler daha sonra poliviniliden florür membranlara aktarıldı.
Membranlar, %0,1 Tween 20 içeren Tris tamponlu salinde %5 yağsız süt ile oda sıcaklığında 1 saat boyunca bloke edildi ve ardından COX-2 (1:1000), α-SMA (1:1000) ve GAPDH (1:5000) primer antikorları ile 4 °C'de gece boyunca inkübe edildi. COX-2, LPS deneyinden alınan örneklerde; α-SMA ise TGF-β1 deneyinden alınan örneklerde analiz edildi. Yıkama işleminin ardından membranlar, horseradish peroksidaz konjugeli sekonder antikorlar (1:5000) ile oda sıcaklığında 1 saat boyunca inkübe edildi. Protein bantları, geliştirilmiş kemilüminesans substratı kullanılarak görselleştirildi ve bir kemilüminesans görüntüleme sistemi ile kaydedildi. Pozlama süreleri COX-2 için yaklaşık 10 s, α-SMA için 10 s ve GAPDH için 2 s olarak belirlendi.
Bant yoğunlukları ImageJ kullanılarak nicelendirilmiştir. COX-2 ve α-SMA sinyalleri, karşılık gelen GAPDH sinyaline göre normalize edilmiştir. Western blotting, altı bağımsız hücre kültürü ve tedavi deneyinden elde edilen protein örnekleri kullanılarak gerçekleştirilmiştir.
İstatistiki analiz
İstatistiksel analizler GraphPad Prism kullanılarak gerçekleştirilmiştir. Veriler ortalama ± standart sapma olarak sunulmuştur. Her bir nicel analiz için altı bağımsız hücre kültürü ve uygulama deneyi yapılmış olup, her bağımsız deney bir biyolojik tekrarlığı temsil etmektedir. Aynı biyolojik deneyden elde edilen teknik tekrarlı ölçümler, istatistiksel analizden önce ortalaması alınmış ve bağımsız gözlemler olarak değerlendirilmemiştir.
Hücre canlılığı analizi için, her biyolojik deney koşul başına altı teknik kuyucuk içermiştir. Kantitatif PCR reaksiyonları her biyolojik örnek için teknik olarak üç tekrarlı, PGE2 ölçümleri ise çift tekrarlı olarak gerçekleştirilmiştir. Western blot kantifikasyonu, bağımsız olarak hazırlanan altı protein örneğine dayandırılmıştır. Bu nedenle, her kantitatif sütun altı bireysel biyolojik replikat değeri içermektedir.
Birden fazla grup arasındaki farklar, tek yönlü varyans analizi ve ardından Tukey çoklu karşılaştırma testi kullanılarak analiz edildi. İki yönlü P değer < 0,05 istatistiksel olarak anlamlı kabul edildi. Bireysel biyolojik tekrarlamanın değerleri, ortalama ve standart sapma ile birlikte gösterildi.
Sonuçlar
Aday Bileşen Taraması, Hedef Geri Çağırma ve Hedef Kesişimi
Aday bileşik-hastalık örtüşen hedeflerinin belirlenmesine yönelik iş akışı Şekil 1A'da özetlenmiştir. C. sinensis'in araşidonik asit, linoleil asetat, β-sitosterol, peroksiergosterol, serevisterol, kolesteril palmitat ve CLR dahil olmak üzere yedi aday bileşiği, OB ≥%30 ve DL ≥0,18 şeklinde önceden tanımlanmış tarama kriterlerini karşılamıştır (Tablo 2). Paralel olarak, GeneCards, DisGeNET, PharmGKB ve TTD'den 1.134 glomerulonefrit ilişkili gen elde edilmiş ve bunların dört veri tabanı arasındaki dağılımı Şekil 1B'de gösterilmiştir. Bileşik ilişkili hedef seti ile hastalık ilişkili gen seti arasındaki kesişim analizi, 23 örtüşen hedef belirlemiştir (Tablo 1, Şekil 1C). Temsili aday bileşikler, örtüşen hedefler ve CGN arasındaki ilişkileri gösteren ilgili bileşik-örtüşen hedef ağı Şekil 1D'de sunulmuştur. Bu örtüşen hedefler arasında PTGS2, CASP3, MAPK1, PPARG, TNFRSF1A ve NOS3 gibi inflamatuar düzenleme, apoptoz ve vasküler ilişkili sinyalizasyon ile ilgili çeşitli genler yer almıştır.
Fonksiyonel Zenginleştirme ve Protein-Protein Etkileşim Analizleri
Örtüşen 23 hedefin biyolojik önemini araştırmak için GO ve KEGG yolak zenginleştirme analizleri gerçekleştirilmiştir. Sonuçlar, bu hedeflerin çok sayıda inflamasyon ve metabolizma ile ilgili yolakta anlamlı düzeyde zenginleştiğini ortaya koymuştur.
GO analizi, hedefleri biyolojik süreç (BP), hücresel bileşen (CC) ve moleküler fonksiyon (MF) kategorilerine ayırmıştır. En anlamlı şekilde zenginleşen BP terimleri arasında lipopolisakkaride yanıt, bakteriyel kökenli moleküllere yanıt ve kas sistemi süreçlerinin düzenlemesi yer almıştır. Hücresel düzeyde hedefler; membran salı, kaveola ve trombosit alfa granül bölmelerinde zenginleşmişken; oksidoredüktaz aktivitesi ve nükleer reseptör bağlanması gibi MF terimleri, oksidatif stres ve transkripsiyonel düzenlemedeki rollere daha fazla işaret etmiştir (Şekil 2A).
KEGG analizi, diyabetik komplikasyonlarda AGE–RAGE sinyali, TNF sinyali, IL-17 sinyali ve HIF-1 sinyali gibi yolakların yanı sıra, lipid ve ateroskleroz yolağının (hsa05417) en anlamlı şekilde zenginleştiğini ortaya koymuştur (q-değeri <1 × 10⁻⁶; Şekil 2B). Özellikle, lipid ve ateroskleroz yolağı; CASP3, MAPK1, PPARG, NOS3 ve TNFRSF1A dahil olmak üzere 23 hedeften 10'sunu içermektedir.
Toplu olarak, bu zenginleştirme sonuçları, örtüşen hedeflerin CGN ile ilgili enflamatuar, stres yanıtı ve endotel ile ilişkili biyolojik süreçlerle fonksiyonel olarak ilişkili olduğunu göstermektedir.
Protein-Protein Etkileşim Ağı Analizi
STRING kullanılarak 23 örtüşen hedef için bir protein-protein etkileşim (PPI) ağı oluşturulmuş ve sonuçta 23 düğüm ile 102 kenardan oluşan bir ağ elde edilmiştir (Şekil 3A). CytoNCA kullanılarak yapılan topolojik analiz, yüksek bağlantılı dokuz merkez hedef belirlemiştir: PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2 ve PRKCA (Şekil 3B). Bu hedefler arasında PTGS2 belirgin bir ağ merkeziliği göstermiş ve bu nedenle sonraki moleküler kenetleme analizi için seçilmiştir. Bu sonuçlar, bileşik-hastalık kesişimi ile potansiyel olarak ilgili, ağ öncelikli aday regülatörlerden oluşan bir alt kümeyi vurgulamaktadır.
Moleküler Kenetleme ve Yeniden Kenetleme Doğrulaması
Ağ analizi ile belirlenen PTGS2 ile ilişkili aday ilişkilerin yapısal makuliyetini daha ayrıntılı değerlendirmek için, celecoxib bağlı bir COX-2 yapısı kullanılarak moleküler docking gerçekleştirilmiştir. Kristal yapı PDB ID 3LN1, COX-2 aktif bölgesine bağlı celecoxib içermesi nedeniyle seçilmiş olup, docking doğrulaması için deneysel olarak tanımlanmış bir ligand bağlanma cebi sağlamaktadır. Birlikte kristallenmiş celecoxib ligandı önce çıkarılmış ve aynı bağlanma cebine yeniden dock edilmiştir. Yeniden dock edilen celecoxib pozu, 0,876 Å'lık bir yeniden docking kareler ortalama sapması (RMSD) ve -12,3 kcal/mol'lik bir öngörülen bağlanma afinitesi ile kristalografik pozu yakından yeniden üretmiştir (Şekil 4A). Bu sonuç, docking protokolünün seçilen docking koşulları altında bilinen ligand bağlanma pozunu yeniden üretebildiğini göstermiştir.
Aynı reseptör, ızgara kutusu ve docking parametreleri kullanılarak, β-sitosterol, celecoxib ile tanımlanan COX-2 bağlanma bölgesine docking yöntemiyle yerleştirilmiştir. β-sitosterol, -7.2 kcal/mol değerinde bir öngörülen bağlanma afinitesi göstermiştir (Şekil 4B). Docking sonrası konum, önceden tanımlanmış COX-2 docking bölgesi içinde yer almış olup, docking yapılan β-sitosterol konumunu çevreleyen kalıntılar arasında ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 ve TYR341 bulunmuştur.
Linoleyl asetat, aday-bileşen listesinde yer aldığı ve ağ analizinde PTGS2 ile ilişkilendirildiği için ikincil bir hesaplamalı aday olarak da değerlendirildi. Aynı docking koşulları altında linoleyl asetat, β-sitosterolinkinden biraz daha avantajlı olan -7.5 kcal/mol değerinde öngörülen bir bağlanma afinitesi gösterdi (Şekil 4C). Öngörülen pozu, docking bölgesi içinde referans ligand selekoksibe yakın konumlandırılmıştı. Linoleyl asetatı çevreleyen kalıntılar ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 ve VAL509 idi.
Hücre Canlılığı, İnflamatuar Aktivasyon ve Profibrotik Aktivasyon
Ağ analizinde PTGS2-ilişkili bir aday olarak tanımlandığı ve anti-inflamatuar ile anti-fibrotik aktiviteye yönelik önceden deneysel desteği olduğu için bileşik düzeyinde doğrulama için β-sitosterol seçilmiştir. Sonraki deneyler için uygun konsantrasyon aralığını belirlemek amacıyla öncelikle hücre canlılığı değerlendirilmiştir. 0.5, 1, 5 ve 10 µM β-sitosterol ile uygulama, kontrol grubuna kıyasla hücre canlılığını belirgin şekilde azaltmamış, buna karşın 20 µM β-sitosterol hafif bir azalmaya neden olmuştur. LPS maruziyeti hücre canlılığını azaltmış ve β-sitosterol ile birlikte uygulama, LPS stimülasyonu altında hücre canlılığını kısmen iyileştirmiş olup en belirgin etki 10 µM konsantrasyonda gözlemlenmiştir (Şekil 5A). Bu sonuçlara dayanarak, sonraki LPS kaynaklı inflamatuar aktivasyon deneyleri için 1, 5 ve 10 µM β-sitosterol kullanılmıştır.
LPS stimülasyonu, HBZY-1 hücrelerinde inflamatuar genlerin mRNA ekspresyonunu belirgin şekilde artırmıştır. Kontrol grubuyla karşılaştırıldığında, LPS grubu Tnf, Il6 ve Ptgs2 için daha yüksek ekspresyon seviyeleri göstermiştir (Şekil 5B-D). β-sitosterol uygulaması, bu genlerin LPS tarafından indüklenen yukarı regülasyonunu konsantrasyona bağlı olarak azaltmıştır. İnhibitör eğilim, LPS artı 10 µM β-sitosterol grubunda en belirgin şekilde görülmüştür. Fonksiyonel bir COX-2 inhibitörü kontrolü olarak eklenen Celecoxib de inflamatuar gen ekspresyonunu bir dereceye kadar azaltmış olsa da, etkisi birkaç transkripsiyonel marker için 10 µM β-sitosterol ile gözlemlenenden daha az belirgin olmuştur (Şekil 5B-D).
Ptgs2 COX-2'yi kodladığı ve PGE2, COX-2 aktivitesinin temel aşağı akış prostaglandin ürünü olduğu için, PGE2 sekresyonu ELISA ile ölçülmüştür. LPS uygulaması, kontrol grubuna kıyasla kültür süpernatantındaki PGE2 konsantrasyonunu artırmıştır. β-sitosterol, LPS tarafından tetiklenen PGE2 üretimini konsantrasyona bağlı olarak azaltmıştır. Celecoxib de PGE2 üretimini azaltmış ve COX-2/PGE2 aksının fonksiyonel inhibisyonu için pozitif kontrol olarak hizmet etmiştir (Şekil 5E). Western blot analizi, LPS'nin COX-2 protein bolluğunu artırdığını daha detaylı göstermiştir. β-sitosterol uygulaması, LPS stimülasyonu altında COX-2 protein seviyelerini düşürmüş ve daha yüksek konsantrasyonda daha güçlü bir azalma gözlemlenmiştir. Buna karşılık, celecoxib PGE2 üretimini azaltmış ancak COX-2 protein bolluğu üzerinde daha sınırlı bir etki göstermiştir (Şekil 5F).
LPS kaynaklı inflamatuar modeli tamamlamak amacıyla, β-sitosterolün mezanjiyal hücrelerdeki fibrotik belirteç ekspresyonunu etkileyip etkilemediğini değerlendirmek için TGF-β1 kaynaklı profibrotik aktivasyon modeli kullanılmıştır. TGF-β1, kontrol grubuna kıyasla Col1a1 ve Acta2 mRNA ekspresyonunu belirgin şekilde artırmıştır (Şekil 6A,B). β-sitosterol, her iki belirteçteki TGF-β1 kaynaklı artışı azaltmış olup bu azalma 10 µM dozunda 5 µM'a göre daha belirgin olmuştur (Şekil 6A,B). Western blot analizi, TGF-β1 stimülasyonu sonrası α-SMA protein ekspresyonunda benzer bir artış olduğunu, β-sitosterol tedavisinin ise TGF-β1 ile işlem görmüş hücrelerde α-SMA protein miktarını azalttığını göstermiştir (Şekil 6C).
VERİ KULLANILABİLİRLİĞİ:
Bu çalışmayı destekleyen ham ve işlenmiş veriler, DOI: https://zenodo.org/records/21649482 adresi altında Zenodo'ya kaydedilmiştir. Western blot'un tam tarama görüntüleri Ek Dosya 1'de sunulmuştur.
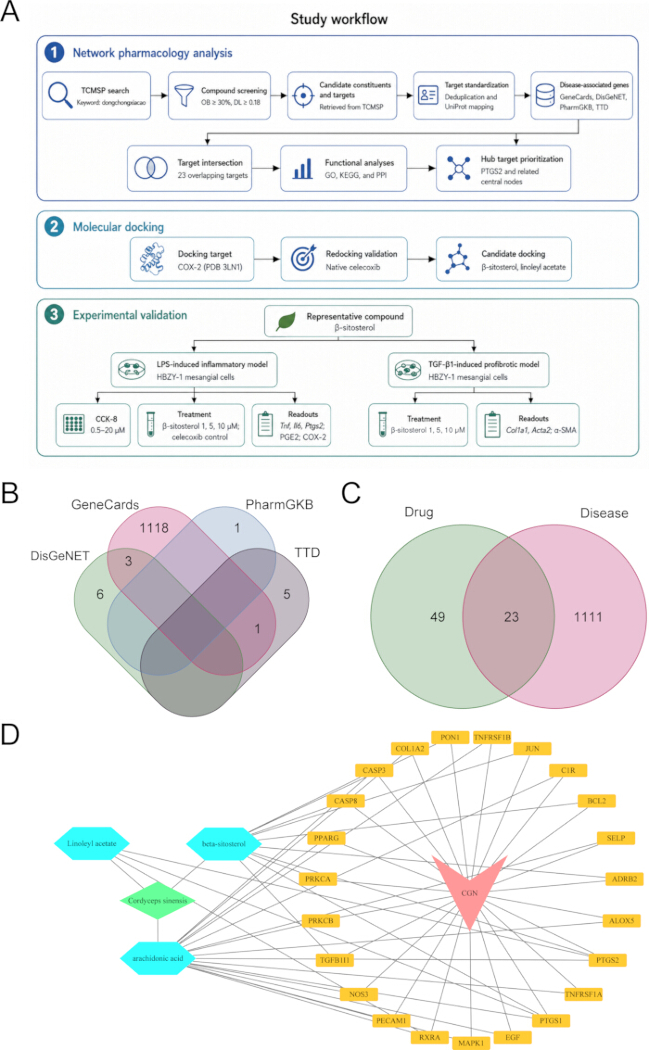
Şekil 1. Glomerülonefritte C. sinensis'in aday bileşik–hastalık örtüşen hedeflerinin iş akışı ve ağ tabanlı tanımlanması. (A) Aday bileşiklerin tanımlanmasını, bileşikle ilişkili hedeflerin alınmasını ve standartlaştırılmasını, glomerülonefrit ile ilişkili genlerin alınmasını, kesişim analizini ve bileşik–örtüşen hedef ağının oluşturulmasını gösteren şematik iş akışı. (B) GeneCards, DisGeNET, PharmGKB ve TTD'den alınan glomerülonefrit ile ilişkili genlerin dağılımını gösteren Venn diyagramı. (C) TCMSP kaynaklı bileşikle ilişkili hedefler ile hastalıkla ilişkili genler arasındaki örtüşmeyi gösteren ve 23 örtüşen hedef belirleyen Venn diyagramı. (D) Bileşik–örtüşen hedef ağı. Yeşil elmas C. sinensis'i, mavi altıgenler aday bileşikleri, sarı daireler örtüşen hedefleri ve pembe üçgen CGN'yi temsil eder. Kenarlar, ilgili bileşik–hedef veya hastalık–hedef ilişkilerini belirtir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
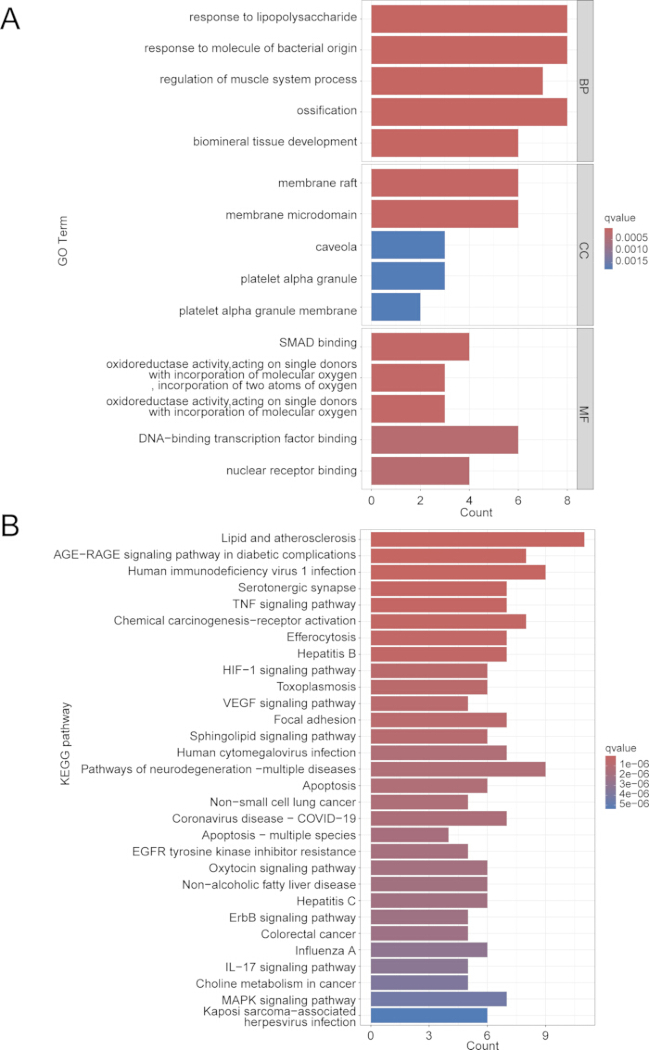
Şekil 2. Örtüşen hedeflerin fonksiyonel zenginleştirme analizi. (A) 23 örtüşen hedefin GO zenginleştirme analizi. En üstteki BP, CC ve MF terimleri belirlenmiştir. Çubuk uzunluğu gen sayısını; renk gradyanı q-değerini temsil eder. (B) 23 örtüşen hedefin KEGG zenginleştirme analizi. Yolaklar, gen sayısına ve istatistiksel anlamlılığa göre sıralanmıştır. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
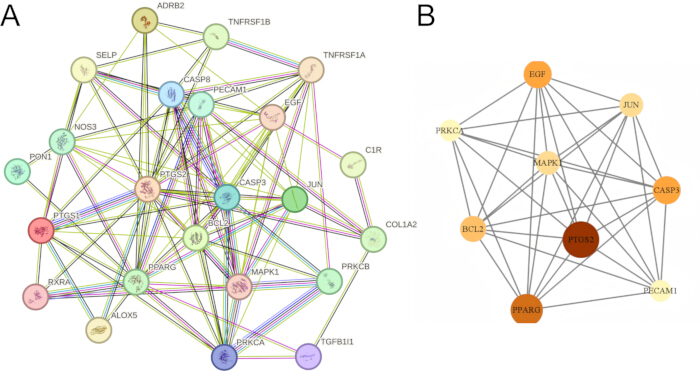
Şekil 3. Örtüşen hedeflerin protein-protein etkileşim ağı ve merkez hedef önceliklendirmesi. (A) Etkileşim puanı eşiği >0.4 olacak şekilde STRING kullanılarak 23 örtüşen hedeften oluşturulan PPI ağı. (B) En üstteki dokuz merkez hedef, CytoNCA tabanlı ağ topolojisi analizi ile önceliklendirilmiştir. PTGS2 belirgin bir ağ merkezselliği göstermiş ve sonraki moleküler kenetlenme analizi için seçilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
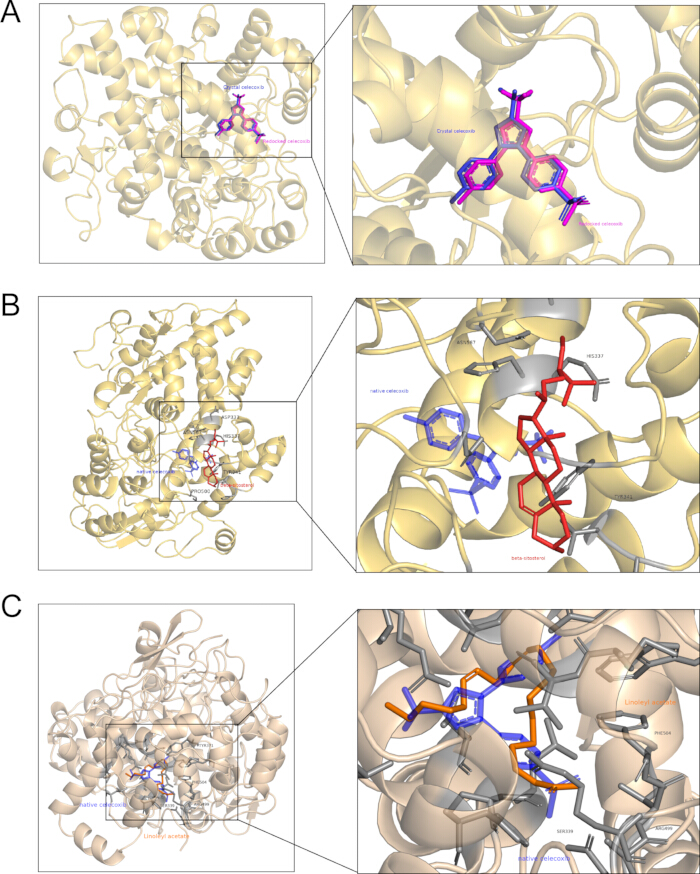
Şekil 4. Seçilen aday bileşiklerin COX-2 ile moleküler kenetlenmesi ve yeniden kenetlenme doğrulaması. (A) Celecoxib ile bağlı fare COX-2 yapısında (PDB ID 3LN1), kristalografik celecoxib pozunun ve en yüksek sıralamalı yeniden kenetlenmiş pozunun süperpozisyonu. Yeniden kenetlenme, deneysel bağlanma yönelimini yeniden üretmiştir. (B) Celecoxib tarafından tanımlanan COX-2 kenetlenme bölgesinde β-sitosterol'ün en yüksek sıralamalı kenetlenme pozu. Kristalografik celecoxib pozu, mekansal referans olarak eklenmiştir. (C) Aynı kenetlenme bölgesinde linoleil asetatın en yüksek sıralamalı kenetlenme pozu. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
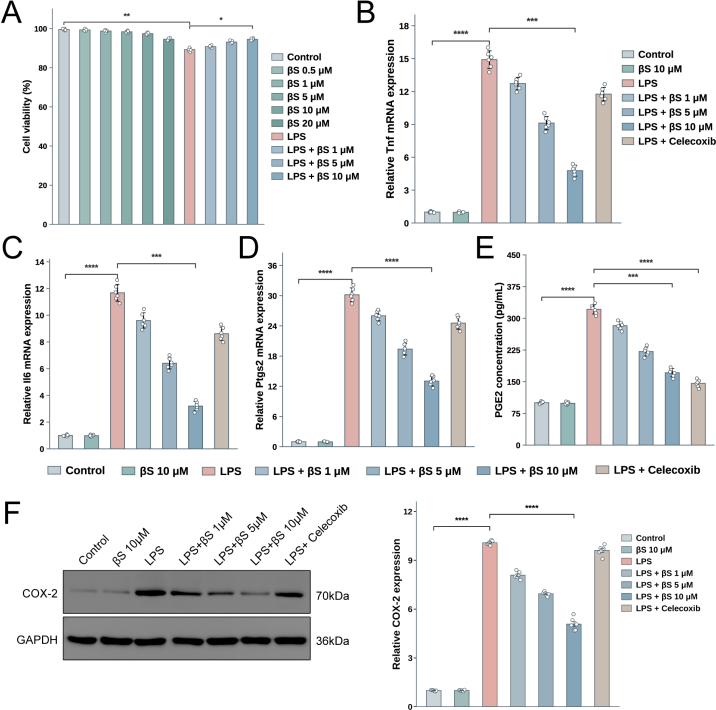
Şekil 5. β-Sitosterol, HBZY-1 mezangiyal hücrelerde LPS tarafından indüklenen inflamatuar aktivasyonu ve PGE2 üretimini azaltır. (A) Hücre canlılığı Cell Counting Kit-8 analizi kullanılarak ölçülmüştür. Hücreler 24 saat boyunca 0,5, 1, 5, 10 veya 20 µM β-sitosterol ile muamele edilmiştir. LPS ile stimüle edilen gruplarda hücreler, 24 saat boyunca 1 µg/mL LPS'ye maruz bırakılmadan önce 2 saat boyunca 1, 5 veya 10 µM β-sitosterol ile ön işlemden geçirilmiştir. Hücre canlılığı, Kontrol grubuna göre bağıl olarak ifade edilmiştir. (B–D) Tnf (B), Il6 (C) ve Ptgs2 (D) mRNA ekspresyonlarının kantitatif gerçek zamanlı PCR analizi. Gen ekspresyonu Gapdh üzerinden normalize edilmiş ve Kontrol grubuna göre bağıl olarak ifade edilmiştir. (E) Kültür süpernatantlarındaki PGE2 konsantrasyonları enzimle bağlantılı immünosorbent analiz (ELISA) ile ölçülmüştür. Celecoxib, COX-2'ye bağımlı prostaglandin üretiminin baskılanması için fonksiyonel pozitif kontrol olarak eklenmiştir. (F) Belirtilen muamele gruplarındaki COX-2 ve GAPDH'nin temsili western blot görüntüleri. Veriler, bireysel biyolojik replika değerleri gösterilmek suretiyle, altı bağımsız biyolojik deneyden elde edilen ortalama ± SD olarak sunulmuştur. Teknik replika değerleri analizden önce ortalaması alınmıştır. Karşılaştırmalar, tek yönlü ANOVA ve ardından Tukey çoklu karşılaştırma testi kullanılarak yapılmıştır. Anlamlılık, münferit panellerdeki köşeli ayraçlarla belirtilmiştir: *P < 0,05, **P < 0,01, ***P < 0,001 ve ****P < 0,0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayınız.
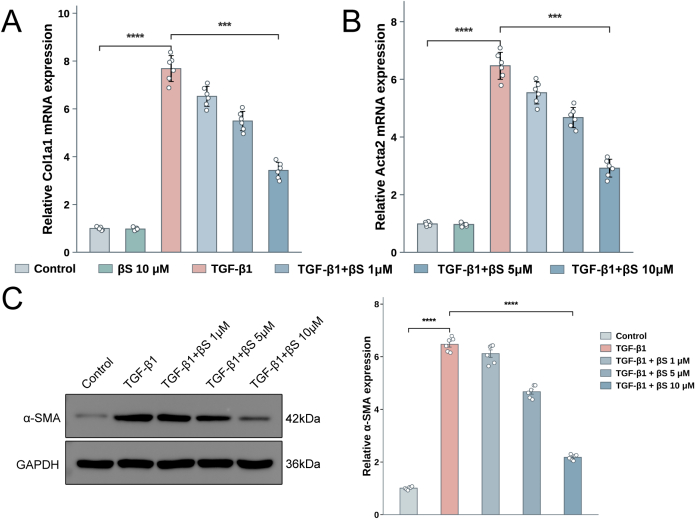
Şekil 6. β-Sitosterol, HBZY-1 mezanjiyal hücrelerinde TGF-β1 ile indüklenen profibrotik belirteç ekspresyonunu azaltır. (A–B) Col1a1 (A) ve Acta2 (B) mRNA ekspresyonunun kantitatif gerçek zamanlı PCR analizi. Gen ekspresyonu Gapdh ile normalize edilmiş ve Kontrol grubuna göre bağıl olarak ifade edilmiştir. (C) Belirtilen tedavi gruplarında α-SMA ve GAPDH'ye ait temsilci western blot görüntüleri. Veriler, bireysel biyolojik replika değerleri gösterilmek üzere altı bağımsız biyolojik deneyden elde edilen ortalama ± SD olarak sunulmuştur. Teknik replika değerleri analizden önce ortalanmıştır. Karşılaştırmalar, tek yönlü ANOVA ve ardından Tukey çoklu karşılaştırma testi kullanılarak gerçekleştirilmiştir. Anlamlılık, bireysel panellerdeki köşeli parantezlerle belirtilmiştir: *P < 0.05, **P < 0.01, ***P < 0.001 ve ****P < 0.0001. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
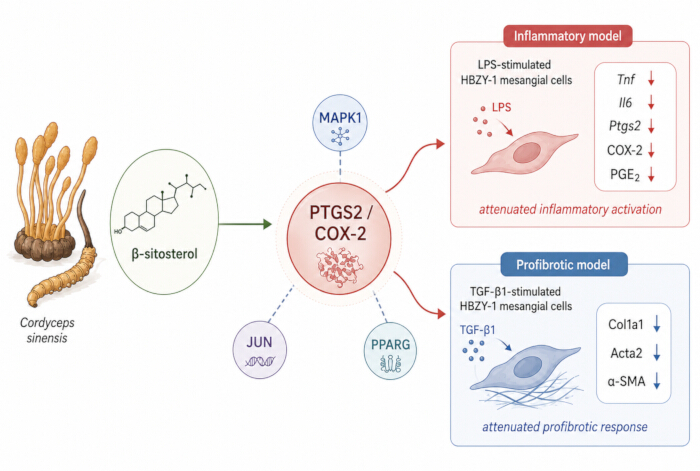
Şekil 7...'nin entegre yorumlanması βHBZY-1 hücrelerinde sitosterolle ilişkili inflamatuar ve profibrotik yanıtlar. Ağ ve kenetlenme analizleri önceliklendirildi PTGS2şunları içeren daha geniş bir bağlamdaki /COX-2 MAPK1, JUNve PPARG. β-Sitosterol tedavisi, LPS tarafından indüklenen azalmalarla ilişkilendirilmiştir Tnf, Il6ve Ptgs2 ekspresyonu, COX-2 protein bolluğu ve PGE2 üretimi ile birlikte TGF- seviyelerindeki azalmalarβ1-indüklenmiş Col1a1, Acta2ve α-SMA ekspresyonu. Lütfen bu şeklin daha büyük bir versiyonunu görüntülemek için buraya tıklayın.
| No. | Örtüşen hedef | Hedefle ilişkili aday bileşik(ler) |
| 1 | PTGS1 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 2 | PTGS2 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 3 | CASP3 | β-sitosterol; arachidonic acid |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | linoleyl acetate; arachidonic acid |
| 12 | TNFRSF1A | arachidonic acid |
| 13 | TNFRSF1B | arachidonic acid |
| 14 | ALOX5 | arachidonic acid |
| 15 | SELP | arachidonic acid |
| 16 | C1R | arachidonic acid |
| 17 | COL1A2 | arachidonic acid |
| 18 | PPARG | arachidonic acid |
| 19 | PRKCB | arachidonic acid |
| 20 | NOS3 | arachidonic acid |
| 21 | PECAM1 | arachidonic acid |
| 22 | MAPK1 | arachidonic acid |
| 23 | EGF | arachidonic acid |
Tablo 1: TCMSP kaynaklı bileşik ilişkili hedefler ile glomerulonefrit ilişkili genler arasındaki örtüşen hedefler.Bileşik-hedef kayıtları TCMSP'den alınmış, manuel olarak tekilleştirilmiş ve UniProt kullanılarak resmi insan gen sembollerine standart hale getirilmiştir.
| Molekül Adı | MW | AlogP | OB (%) | Caco-2 | K doğru kan beyin bariyeri (KKB) | DL | FASA | HL |
| Araşidonik asit | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| Linoleil asetat | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-sitosterol | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Peroksiergosterol | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| Serevisterol | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| Kolesteril palmitat | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| Kolesterol (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
Tablo 2: Oral biyoyararlanım ve ilaç benzerliği tarama kriterleri kullanılarak TCMSP'den elde edilen C. sinensis aday bileşenleri. En az %30 oral biyoyararlanım ve en az 0,18 ilaç benzerliği olan bileşikler tutulmuştur. MW, moleküler ağırlık; ALogP, öngörülen oktanol-su partisyon katsayısı; OB, oral biyoyararlanım; Caco-2, öngörülen Caco-2 geçirgenliği; BBB, kan-beyin bariyeri geçişi; DL, ilaç benzerliği; FASA, fraksiyoner negatif erişilebilir yüzey alanı; HL, yarı ömür.
Ek Tablo 1. HBZY-1 sıçan glomerüler mezanjiyal hücrelerinde kantitatif gerçek zamanlı PCR için kullanılan primer dizileri. Tüm diziler 5′ ile 3′ yönünde sunulmuştur.Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Dosya 1. Western blot için tam tarama görüntüleri.Bu dosyayı indirmek için lütfen buraya tıklayın.
Tartışma
Bu çalışma, C. sinensis'in aday bileşenlerinden türetilen PTGS2 ilişkili bir hipotezi incelemek için ağ farmakolojisini, referans ligand doğrulamalı moleküler kenetlenmeyi ve bileşik düzeyinde deneyleri entegre etmiştir. Yedi bileşen önceden tanımlanmış TCMSP tarama kriterlerini karşılamış ve 23 hedef glomerülonefrit ilişkili gen setiyle örtüşmüştür. Protein etkileşim analizi dokuz merkezi hedefi önceliklendirmiş ve bunlar arasından PTGS2, kenetlenme ve deneysel değerlendirme için seçilmiştir. Celecoxib'in yeniden kenetlenmesi, kristalografik pozunu yeniden üretmiş; β-sitosterol ve linoleil asetat ise COX-2 kenetlenme bölgesiyle orta düzeyde öngörülen bir uyumluluk göstermiştir. HBZY-1 mezanjiyal hücrelerde, β-sitosterol, LPS ile indüklenen inflamatuar gen ekspresyonunu, COX-2 bolluğunu ve PGE2 üretimini azaltmış ve TGF-β1 ile indüklenen profibrotik belirteçlerin ekspresyonunu düşürmüştür. Bu bulgular, hesaplamalı önceliklendirmeyi hücresel fenotiplerle ilişkilendirmekte, ancak tanımlanmış bir terapötik mekanizmadan ziyade aday bir düzenleyici ilişkiyi desteklemektedir.
Zenginleştirme sonuçları, örtüşen hedefleri inflamatuar stimülasyon, hücresel stres, lipid düzenlemesi, vasküler fonksiyon ve doku yeniden şekillenmesi ile ilgili biyolojik süreçlere yerleştirmiştir. Lipopolisakkarit ve bakteriyel ürünlere verilen yanıtların zenginleştirilmesi, deneysel doğrulama için kullanılan inflamatuar modelle tutarlılık göstermiştir. TNF, IL-17, AGE-RAGE ve HIF-1 ile ilgili yolaklar da glomerüler inflamasyon ve maladaptif yeniden şekillenme için makul bir fonksiyonel bağlam sağlamıştır6,17,18,19. Bununla birlikte, yolak zenginleştirmesi, açıklanmış genlerin istatistiksel yoğunluğunu yansıtmaktadır ve bir yolağın β-sitosterol tarafından aktive edildiğini veya inhibe edildiğini kanıtlamamaktadır12. Bu nedenle, belirgin lipid ve ateroskleroz açıklamaları, aterosklerozun CGN'deki temel hastalık mekanizmasını temsil ettiğine dair bir kanıttan ziyade, ortak inflamatuar, apoptotik ve vasküler biyoloji olarak yorumlanmalıdır. Benzer şekilde, adayları önceliklendirmek için TCMSP tabanlı oral biyoyararlanım, ilaç benzerliği ve hedef kayıtları kullanılmıştır.
PTGS2, bileşik hastalık kesişiminde yer aldığı, yüksek ağ merkezliliği gösterdiği ve deneysel olarak Ptgs2 transkripsiyonu, COX-2 protein bolluğu ve PGE2 üretimiyle ilişkilendirildiği için ilgili bir düğüm olarak ortaya çıkmıştır. Hesaplamalı ve hücresel düzeyler arasındaki bu uyum, PTGS2 ile ilişkili yanıtın incelenmesine yönelik gerekçeyi güçlendirmektedir. Ancak bu durum, PTGS2'nin böbrekte tekdüze olarak patojenik olduğu anlamına gelmez. COX türevli prostanoidler; renal kan akışına, tuz yönetimine ve adaptif homeostaza katılırlar ve hücre tipine, reseptör dağılımına, hastalık evresine ve yerel konsantrasyona göre koruyucu veya zararlı etkiler gösterebilirler20,21. Deneysel nefritte, celecoxib PGE2 ile ilişkili çıktıyı azaltırken, PGE2'nin kendisi mezanjiyal hücrelerde prostaglandin reseptör ekspresyonunu etkilemiştir22. Bu gözlemler, COX-2 ve PGE2'nin biyolojik sonuçlarının basit bir lineer proinflamatuar yolağın ötesine geçtiğini göstermektedir20,23. Celecoxib ile karşılaştırma, hedef ekspresyonunu enzim fonksiyonundan ayırt etmeye yardımcı olur. Celecoxib, fonksiyonel bir COX-2 inhibitörü olarak rolüyle tutarlı bir şekilde PGE2'de en belirgin azalmayı sağlamış; ancak Ptgs2 ekspresyonu ve COX-2 protein bolluğu üzerinde daha sınırlı bir etki göstermiştir22. β-Sitosterol; daha düşük Tnf, Il6, Ptgs2, COX-2 ve PGE2'yi içeren daha geniş bir patern sergilemiştir. Bu fark, üstün bir COX-2 inhibitör gücü anlamına gelmez. Aksine, celecoxib öncelikle katalitik aktivitenin inhibisyonu yoluyla prostaglandin sentezini kısıtlarken, β-sitosterol'ün PTGS2'nin indüklendiği inflamatuar durumu değiştirebileceğini düşündürmektedir. β-sitosterol'ün COX-2 ile fonksiyonel olarak etkileşime girip girmediğini belirlemek için doğrudan enzim analizleri, hedef etkileşim çalışmaları ve PTGS2 pertürbasyonu gerekecektir.
Ağ bulguları ayrıca şunları önermektedir ki PTGS2 izole bir moleküler düğüm olarak yorumlanmamalıdır. MAPK1, JUNve PPARG protein etkileşim ağında birlikte önceliklendirildi ve prostanoid sentezi daha geniş bir sinyalizasyon ve transkripsiyonel bağlama yerleştirdi. Renal mezangial hücrelerde, sfingozin 1-fosfat, S1P reseptör 2 bağımlı p42/p44 MAPK sinyalizasyonu aracılığıyla COX-2 ekspresyonunu ve PGE2 oluşumunu artırarak, bu hücre tipinde MAPK aktivitesinin COX-2/PGE2 yanıtının yukarısında yer alabileceğine dair doğrudan kanıt sağladı24Çünkü JUN AP-1 transkripsiyon faktörü kompleksinin temel bir bileşeni olan AP-1, MAPK aktivasyonu ile [...] arasındaki arayüzlerden birini sağlayabilir PTGS2 transkripsiyon. Bu olasılıkla tutarlı olarak, 15-deoksi-Δ12,14-prostaglandin J2, IL-1'i baskıladıβkültürlenmiş mezanjiyal hücrelerde AP-1 aktivitesi ile birlikte indüklenen COX-2 ekspresyonu25Böbrek dışı hücresel modellerde, β-sitosterol, ERK ve p38 aktivasyonunu, NF- ile azaltmıştırκLPS maruziyeti sonrası B sinyalleşmesi, COX-2 ekspresyonu ve inflamatuar sitokin üretimi14,15Bu gözlemler, şunlardaki koordineli azalmalar için makul bir bağlam sunmaktadır: Tnf, Il6, Ptgs2, mevcut çalışmada gözlemlenen COX-2 ve PGE2. Ancak, belirtilen β-sitosterol çalışmaları, renal mezanjiyal hücreler yerine mikroglial veya endotel hücrelerde yürütülmüştür ve MAPK1 fosforilasyon ve JUN aktivite burada ölçülmemiştir. Bu nedenle, mevcut sonuçlar bir ... oluşturmamaktadır MAPK1-bağımlı veya JUN-bağımlı mekanizması PTGS2 tarafından düzenlenmesi β$\beta$-sitosterol. PPARG ile kesişebilir PTGS2basit bir doğrusal aşağı akış efektörü olarak değil, lipid-hassasiyetli transkripsiyonel regülasyon ve profibrotik mezangiyal hücre fenotipinin modülasyonu yoluyla merkezli bir ağ şeklinde PTGS2Glomerüler mezanjiyal hücrelerde, doğal ve sentetik PPARγ ligandlar TGF-β'yı inhibe ettiβ1 ile indüklenen fibronektin ekspresyonu, öte yandan ayrı bir çalışma ise PPARγ agonistler TGF-β'yı azalttıβ-indüklenmiş mezangiyal hücre aktivasyonu, α-PKA ve CREB sinyallenenmesinin zayıflatılması yoluyla SMA ekspresyonu ve kollajen IV birikimi26,27Diyabetik fareler ve yüksek glikozla stimüle edilmiş glomerüler mezanjiyal hücreler üzerinde yapılan daha güncel çalışmalar, NF-κB/COX-2 ve PPARγrenal inflamasyon ve fibrozis ile ilişkili paralel düzenleyici eksenler içindeki UCP2, doğrudan kanıt göstermeksizin potansiyel fonksiyonel yakınsamayı desteklemektedir PTGS2-PPARG kenetleme28Bu bulgular, ...'daki azalmalar için biyolojik olarak makul bir bağlam sunmaktadır. Col1a1, Acta2ve αmevcut TGF-beta uyarımında gözlemlenen SMA-β1 model. Ancak, PPARG ekspresyon, transkripsiyonel aktivite ve ligand etkileşimi değerlendirilmemiştir. Bu nedenle, mevcut veriler gözlemlenen profibrotik yanıtı şuna atfedemez PPARG aktivasyon veya ardışık bir tanımlama MAPK1-PTGS2-PPARG sinyalizasyon yolu. Önemli olan şu ki, MAPK1 ve PPARG entegre bileşik-hastalık ağı düzeyinde önceliklendirildi ve doğrudan şeklinde yorumlanmamalıdır βmevcut analize dayalı -sitosterol hedefleri.
Kenetlenme analizi aynı kanıt sınırı dahilinde yorumlanmalıdır. 0,876 Å'lik bir yeniden kenetlenme RMSD değeri, seçilen kenetlenme protokolünün 3LN1 yapısındaki bilinen celecoxib yönelimini yeniden üretebildiğini göstermiştir. β-sitosterol ve linoleil asetatın celecoxib'e kıyasla önemli ölçüde daha az elverişli olan öngörülen afiniteleri, önceden tanımlanmış bölge içindeki uzamsal yerleşimi desteklemiş, ancak eşdeğer bir bağlanma gücü veya farmakolojik etkiyi desteklememiştir29,30. Linoleyl asetat ve β-sitosterol arasındaki 0,3 kcal/mol'lik fark, tek başına biyolojik bir sıralamayı haklı çıkarmak için çok küçüktür. β-sitosterol, ağ ilişkisiyle birlikte inflamasyon ve fibrozis ile ilgili daha geniş bir deneysel literatürün bulunması nedeniyle sonraki testler için seçilmiştir14,15,16. Önceki çalışmalar, LPS'ye maruz kalan mikroglial ve endotel hücrelerde TNF-α, IL-6 ve COX-2'de azalmalarla birlikte MAPK ve NF-κB sinyallendirmesinde değişiklikler bildirmiştir14,15. Araşidonik asit, endojen bir COX substratı olduğu için farklı bir yorumlama gerektirir21. TCMSP türevli ağdaki varlığı, anti-inflamatuar bir inhibisyon etkisini göstermez ve veri tabanı tabanlı bileşik-hedef ilişkilerinin yönelimi tanımlamadığını ortaya koyar. HBZY-1 hücrelerinde gözlenen inflamatuar belirteçlerdeki konsantrasyona bağlı azalmalar, bu önceki hücresel bulgularla tutarlıdır ve kanıtları glomerüler mezanjiyal bir bağlama genişletmektedir14,15. TGF-β1 modeli, hastalık sürecinin ayrı bir yönünü ele almıştır31. β-sitosterol, TGF-β1 stimülasyonundan sonra Col1a1 ve Acta2 transkripsiyonunu azaltmış ve α-SMA bolluğunu düşürmüştür. İnsan alveolar epitel hücreleri üzerinde yapılan önceki çalışmalar da benzer şekilde β-sitosterolün TGF-β1 tarafından indüklenen kolajen, fibronektin ve α-SMA ekspresyonunu azalttığını bulmuştur, ancak söz konusu çalışma farklı bir doku ve hücresel süreci kapsamaktadır16. Bu nedenle mevcut bulgular, mezanjiyal hücrelerde profibrotik bir fenotipe karşı aktiviteyi desteklemekte ancak spesifik bir TGF-β reseptörünün veya SMAD bağımlı bir mekanizmanın inhibisyonunu kanıtlamamaktadır31.
Yorumlama kapsamını belirleyen birkaç kısıtlılık mevcuttur. Hastalık gen seti, geniş kapsamlı glomerulonefrit terimi kullanılarak oluşturulmuştur ve belirli bir klinik veya histolojik CGN alt tipine özgü değildir. Hesaplamalı analizlerde insan anotasyonları, docking işlemleri fare COX-2 yapısı kullanılmış ve deneyler sıçan HBZY-1 hücrelerinde gerçekleştirilmiştir. Ortolog ilişkiler karşılaştırmayı desteklese de, regülasyonda ve ligand tanımada türe bağlı farklılıklar olasılığı devam etmektedir. Tek bir ölümsüzleştirilmiş mezanjiyal hücre hattı; mezanjiyal hücreler, podositler, endotel hücreler, infiltre olan bağışıklık hücreleri ve tubulointerstisyel bölme arasındaki etkileşimleri temsil edemez. Çalışmada ayrıca doğrudan bağlanma, COX-2 enzimatik aktivitesi, PTGS2 bağımlılığı, primer insan böbrek hücreleri, in vivo etkinlik, farmakokinetik veya böbrek maruziyeti değerlendirilmemiştir. Son olarak, tanımlanmış bir β-sitosterol preparasyonunun test edilmesi, öngörülen bileşenler ile karakterize edilmemiş bir ekstrakt arasındaki önceki tutarsızlığı gidermektedir; ancak bu durum, β-sitosterolün tüm C. sinensis etkilerinden sorumlu olduğunu veya diğer bileşenlerin inaktif olduğunu kanıtlamamaktadır.
Toplu olarak değerlendirildiğinde; ağ, kenetlenme ve hücre tabanlı bulgular, β-sitosterol'in HBZY-1 hücrelerinde azalmış inflamatuar ve profibrotik aktivasyonla ilişkili temsili bir aday olduğunu desteklemektedir. Sonuçlar, PTGS2/COX-2/PGE2 ile ilişkili bir yanıtın modülasyonu ile tutarlıdır ancak doğrudan COX-2 bağlanmasını, PTGS2'ye bağlı nedenselliği veya CGN'de terapötik etkinliği kanıtlamamaktadır. Daha ileri hedef etkileşimi, genetik perturbasyon, primer hücre ve in vivo çalışmalara ihtiyaç vardır (Şekil 7).
Açıklamalar
Yazarlar, herhangi bir çıkar çatışması olmadığını beyan ederler. Dil düzenlemesine ve şematik figürlerin ön tasarımına yardımcı olmak için yapay zeka tabanlı araçlar (ChatGPT, OpenAI) kullanılmıştır. Şekil 1A ve 7'nin ön grafik taslaklarının hazırlanmasına yardımcı olmak için Üretken Yapay Zeka kullanılmış, ardından bu taslaklar bildirilen yöntemler ve sonuçlarla tutarlılığı sağlamak amacıyla yazarlar tarafından incelenmiş ve revize edilmiştir. Yapay zeka destekli tüm çıktılar yazarlar tarafından kritik bir şekilde değerlendirilmiş ve onaylanmıştır. Yazarlar, nihai figür içeriğini doğrulamış ve makalenin bütünlüğü ile doğruluğu konusunda tüm sorumluluğu üstlenmişlerdir.
Teşekkürler
Bu çalışma, Entegre Geleneksel Çin ve Batı Tıbbı Nefropati Karakteristik Uzmanlık Alanı (ZYTSZK2-3) ve Kronik Hastalık Yönetimi Perspektifinden Kronik Böbrek Hastalığının Geleneksel Çin Tıbbı Müdahale Stratejisi Üzerine Çalışma (202240169) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Mutlak etanol | Sigma-Aldrich/Merck | E7023 | 200 proof, denatüre edilmemiş moleküler biyoloji sınıfı etanol; β-sitosterol stok çözeltisi için çözücü. |
| AutoDock Vina | Scripps Research | Version 1.1.2 | Moleküler kenetlenme (docking) simülasyonu |
| Biyogüvenlik kabini | Thermo Fisher Scientific | 1300 Series A2 | Steril hücre kültürü işlemleri |
| Celecoxib | MedChemExpress | HY-14398 | Pozitif kontrol olarak kullanılan selektif COX-2 inhibitörü; DMSO içinde 10 mM stok. |
| Cell Counting Kit-8 | Dojindo Molecular Technologies, Inc. | CK04 | Hücre canlılığı için WST-8 kolorimetrik testi; absorbans 450 nm'de ölçülmüştür. |
| Kemilüminesans görüntüleme sistemi | Bio-Rad Laboratories | ChemiDoc MP | Western blot görüntüleme |
| clusterProfiler R paketi | Bioconductor | Version 4.10.0 | GO ve KEGG zenginleştirme analizi |
| CO2 hücre kültürü inkübatörü | Thermo Fisher Scientific | Forma Series II 3111 | 37 °C ve %5 CO2'de hücre kültürü inkübasyonu |
| COX-2 (D5H5) Tavşan Monoklonal Antikoru | Cell Signaling Technology | 12282 | İnsan, fare ve sıçan COX-2 için doğrulanmış Western blot; 1:1.000 oranında kullanılmıştır. |
| CytoNCA eklentisi | Cytoscape App Store | Version 2.1.6 | Hub hedef topolojik analizi |
| Cytoscape yazılımı | Cytoscape Consortium | Version 3.8.0 | Ağ görselleştirme ve analizi |
| Dimetil sülfoksit | Sigma-Aldrich/Merck | D2650 | Steril filtrelenmiş BioReagent, ≥99,7%; celecoxib stok çözeltisi için çözücü. |
| DisGeNET veri tabanı | Integrative Biomedical Informatics Group | Uygulanamaz | Glomerülonefrit için hastalık-gen sorgulama |
| Dulbecco's Modified Eagle Medium (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | HBZY-1 hücre kültürü için bazal besiyeri |
| Geliştirilmiş kemilüminesans substratı | Beyotime Biotechnology | P0018S | Western blot bant görselleştirmesi |
| Fetal bovin serumu | Gibco/Thermo Fisher Scientific | 10099-141C | Hücre kültürü serum takviyesi |
| GAPDH (D16H11) Tavşan Monoklonal Antikoru | Cell Signaling Technology | 5174 | Western blot yükleme kontrolü; insan, fare ve sıçan GAPDH ile reaktif; kurum içi optimizasyon sonrası 1:5.000 oranında kullanılmıştır. |
| GeneCards veri tabanı | Weizmann Institute of Science | NA | Glomerülonefrit ile ilişkili genlerin sorgulanması |
| GraphPad Prism | GraphPad Software | Version 9.0.0.121 | In vitro deneysel verilerin istatistiksel analizi |
| HRP-konjuge keçi anti-tavşan IgG | Proteintech Group | SA00001-2 | Tavşan primer antikorları için sekonder antikor |
| ImageJ yazılımı | National Institutes of Health | Version 1.54 | Western blot densitometrik analizi |
| Ters faz-kontrast mikroskobu | Olympus | CKX53 | Hücre morfolojisi gözlemi |
| org.Hs.eg.db R paketi | Bioconductor | Version 3.18.0 | Zenginleştirme analizi için insan gen anotasyonu |
| Penisilin-Streptomisin çözeltisi | Gibco/Thermo Fisher Scientific | 15140122 | Hücre kültürü için antibiyotik takviyesi |
| PGE2 Parametre Test Kiti | R&D Systems, a Bio-Techne brand | KGE004B | Hücre kültürü süpernatantları için çok türlü kompetitif ELISA; test aralığı 39–2.500 pg/mL; 450 nm'de kolorimetrik deteksiyon. |
| PharmGKB veri tabanı | Pharmacogenomics Knowledgebase | NA | Hastalıkla ilişkili hedef sorgulama |
| PubChem veri tabanı | National Center for Biotechnology Information | NA | Ligand yapılarının sorgulanması |
| PVDF membran | Millipore/Merck | IPVH00010 | Western blotting için protein transfer membranı |
| PyMOL moleküler grafik sistemi | Schrödinger, LLC | Version 2.6.2 | Kenetlenme pozisyonu görselleştirmesi |
| R yazılımı | R Foundation for Statistical Computing | Version 4.3.2 | Hedef kesişim ve zenginleştirme analizi |
| Sıçan glomerüler mezangiyal hücre hattı (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | In vitro mezangiyal hücre doğrulama modeli |
| RCSB Protein Veri Bankası | Research Collaboratory for Structural Bioinformatics | PDB ID: 3LN1 | PTGS2/COX2 kristal yapısının sorgulanması |
| Rekombinan insan TGF-β1 proteini | PeproTech, a Thermo Fisher Scientific brand | 100-21-10UG | HEK293 kaynaklı rekombinan insan TGF-β1; 10 ng/mL'de profibrotik stimülasyon. |
| SDS-PAGE elektroforez sistemi | Bio-Rad Laboratories | Mini-PROTEAN Tetra | SDS-PAGE ile protein ayrımı |
| STRING veri tabanı | ELIXIR/STRING Consortium | Version 12.0 | Protein-protein etkileşim ağı oluşturma |
| TCMSP veri tabanı | Traditional Chinese Medicine Systems Pharmacology Database | NA | Cordyceps sinensis aday bileşiklerinin taranması |
| Therapeutic Target Database | Innovative Drug Research and Bioinformatics Group | NA | Terapötik hedef sorgulama |
| α-SMA primer antikoru | Proteintech Group | 14395-1-AP | α-SMA protein ekspresyonu deteksiyonu |
| β-Sitosterol (saflık >%98) | MedChemExpress | HY-N0171A | CAS 83-46-5; hücre tedavisi için tanımlanmış bileşik; mutlak etanol içinde 10 mM stok. |
Kaynaklar
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).