Yığın, tek hücre ve mekansal transkriptomik analizlerin yanı sıra makine öğrenimi tabanlı sağkalım modellemesi ve deneysel doğrulamanın kullanıldığı bu çalışma, PPARG'yi osteosarkomda yaşlanma ile ilişkili bir aday prognostik gen olarak belirlemekte ve düşük ekspresyonunu TARGET-OS'taki kötü sağkalım ile vasküler ve mikroçevresel özelliklerle ilişkilendirmektedir.
Araştırma makalesi
İntegratif Toplu, Tek Hücre ve Uzamsal Transkriptomik Analizler, Osteosarkomda PPARG'yi Senesansla İlişkili Aday Bir Prognostik Gen Olarak Belirlemektedir
* These authors contributed equally
Bu makalede
Özet
Özet
Osteosarkom; metastatik, nüks eden veya tedaviye dirençli hastalık durumlarında zorlayıcı olmaya devam etmektedir. Bu çalışma, senesans ile ilişkili prognostik genleri belirlemeyi ve bunların uzamsal bağlamlarını karakterize etmeyi amaçlamıştır. GSE99671'de DESeq2 kullanılarak eşleştirilmiş diferansiyel ekspresyon analizi yapılmış, ardından CellAge senesans gen seti ile kesişim analizi gerçekleştirilmiştir. TARGET-OS kohortuna ait transkriptomik veriler UCSC Xena'dan elde edilmiştir. Aday genler; tek değişkenli Cox regresyonu, Kaplan-Meier analizi, zamana bağımlı alıcı işletim karakteristik analizi, LASSO Cox regresyonu, tekrarlanan LASSO analizi ve rastgele sağkalım ormanı modellemesi kullanılarak değerlendirilmiş ve klinik kovaryatlar düzeltilmiş Cox modellerine dahil edilmiştir. Karakterizasyon için fonksiyonel zenginleştirme, immün mikroçevre analizi, tek hücre transkriptomiği, SP_BS3 uzamsal transkriptomiği, GSE36001 ekspresyon doğrulaması ile osteosarkom 143B hücreleri ve osteoblast hücrelerinde qRT-PCR ve Western blot doğrulamaları kullanılmıştır. GSE99671'de, düzeltilmiş P < 0.05 ile 2.248 gen diferansiyel olarak eksprese edilmiş ve bunların 866 CellAge geni ile kesişimi 105 senesansla ilişkili diferansiyel eksprese gen vermiştir. TARGET-OS'ta, daha düşük PPARG ekspresyonu daha yüksek mortalite riski ile ilişkili bulunmuştur (tek değişkenli HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494; düzeltilmiş HR = 0.224, 95% CI = 0.085–0.589, P = 0.00241). Klinik modele PPARG'nin eklenmesi, C-indeksini 0.707'den 0.829'a yükseltmiştir. PPARG hem GSE99671 hem de GSE36001'de downregüle olmuştur ve qRT-PCR ile Western blotting, osteosarkom 143B hücrelerinde PPARG mRNA ve protein ekspresyonunun osteoblast hücrelerine göre daha düşük olduğunu doğrulamıştır. Tek hücre analizi PPARG'yi endotel hücreleri, perisitler, makrofajlar/monositler ve tümörle ilişkili stromal hücrelerde lokalize etmiştir. Uzamsal transkriptomik analiz, PPARG ekspresyonu ile CellAge senesans, endotel ilişkili ve perisit ilişkili skorlar arasında zayıf ancak anlamlı pozitif korelasyonlar olduğunu göstermiştir. Bu bulgular, PPARG'yi osteosarkomda olumsuz sağkalım ve vasküler mikroçevresel özelliklerle ilişkili, CellAge türevli bir aday prognostik biyobelirteç olarak önermekte ve risk stratifikasyonu ile senesansla ilişkili tümör mikroçevresi üzerindeki potansiyel ilişkisinin araştırılmasını desteklemektedir. GSE36001 yalnızca harici ekspresyon doğrulaması sağlamıştır; bağımsız sağkalım doğrulaması yapılmamıştır.
Giriş
Osteosarkom, çocuklarda, ergenlerde ve genç yetişkinlerde görülen en yaygın primer malign kemik tümörüdür1. Çoklu ajan kemoterapisinin cerrahi ile kombinasyonu lokalize hastalık için sonuçları iyileştirmiş olsa da2,3, metastatik, rekürren veya tedaviye dirençli osteosarkomu olan hastaların uzun dönemli sağkalım oranları düşük kalmaya devam etmektedir3,4. Yeni kanıtlar, oksidatif stresle tetiklenen epigenetik yeniden modellemenin metastatik adaptasyonu ve tümör ilerlemesini kolaylaştırabileceğini göstermekte ve agresif kanser fenotiplerinin temelinde yatan karmaşık moleküler plastisiteyi vurgulamaktadır5. Hem klinik olarak yorumlanabilen hem de biyolojik olarak bilgilendirici olan güçlü biyobelirteçlerin sayısı hala sınırlıdır. Bu nedenle, verilerin birden fazla katmanı boyunca osteosarkom heterojenliğini ve prognostik riski ortaya koyan moleküler özelliklerin belirlenmesi önemini korumaktadır.
Hücresel yaşlanma (senesans); telomer disfonksiyonu, DNA hasarı, oksidatif stres, onkogen aktivasyonu ve terapötik baskı ile indüklenen stabil bir hücre döngüsü durdurma programıdır6. Yaşlanma, anormal proliferasyonu kısıtlayabilir; ancak yaşlanmış hücreler aynı zamanda inflamatuar, kemokin, büyüme faktörü ve hücre dışı matris yeniden şekillendirme programları aracılığıyla tümör mikroçevresini yeniden düzenleyebilir7,8. Osteosarkomda, yaşlanma ile ilişkili genler hem tümör hücresine özgü stres durumlarını hem de malign olmayan mikroçevresel bölmeleri yansıtabilir, ancak bunların prognostik önemi vele mekansal organizasyonu sistematik olarak değerlendirilmemiştir.
PPARG, lipid metabolizması, inflamatuar düzenleme, hücresel diferansiyasyon ve immün modülasyonda rol oynayan ligand ile aktive olan bir nükleer reseptör olan peroksizom proliferatörle aktive olan reseptör gammanın kodされました9. PPARG'nin kanserdeki rolü bağlama göre değişkenlik gösterir10. Bazı durumlarda PPARG, diferansiyasyon ve anti-inflamatuar durumlarla ilişkilendirilirken, diğer durumlarda adaptif tümör veya stromal programları destekleyebilir. Bununla birlikte, osteosarkomdaki ekspresyon paterni, prognostik değeri, hücresel ve uzamsal lokalizasyonu henüz tam olarak karakterize edilmemiştir.
Bu çalışmada, GSE99671'deki diferansiyel eksprese olan genler belirlenmiş ve CellAge senesans gen seti ile kesiştirilerek 105 adet senesansla ilişkili diferansiyel eksprese gen elde edilmiştir. Ardından, PPARG'yi çekirdek gen olarak belirlemek için TARGET-OS sağkalım verileri, çoklu makine öğrenimi ve sağkalım modelleme yaklaşımları ile klinik düzeltmeler kullanılmıştır. PPARG; bulk fonksiyonel ve immün mikroçevre analizleri, tek hücre transkriptomiği, uzamsal transkriptomik, GSE36001'den harici ekspresyon doğrulaması ile 143B osteosarkom hücre hattı ve insan osteoblastlarında qRT-PCR ve Western blot doğrulaması kullanılarak daha ayrıntılı bir şekilde karakterize edilmiştir.
Protokol
Bu çalışmada analiz ve doğrulama için halka açık veri setleri ve hücre hatları kullanılmış olup, insan katılımcılar veya klinik doku örnekleri yer almamıştır; bu nedenle etik onay gerekmemiştir.
GSE99671 ve CellAge kesişiminde diferansiyel ekspresyon analizi
GSE99671 için ham sayım verileri ve örnek gruplandırma bilgileri GEO'dan elde edildi11,12. On sekiz çift osteosarkom ve eşleştirilmiş normal örnek analiz edildi. Eşleştirilmiş diferansiyel ekspresyon analizi, pair_id'nin eşleştirilmiş birey etkilerini, condition'ın ise tümör dokusunu normal doku ile karşılaştırdığı ~ pair_id + condition tasarım formülü ile DESeq2 kullanılarak gerçekleştirildi13. En az üç örnekte okuma sayısı en az 10 olan genler korundu. Diferansiyel ekspresyon, düzeltilmiş P < 0,05 olarak tanımlandı ve görselleştirme için düzeltilmiş P < 0,05 ve |log2FC| ≥ 1 şeklindeki daha katı bir eşik uygulandı. Gen sembolleri büyük harfe dönüştürüldükten sonra, diferansiyel olarak eksprese edilen genler 866 CellAge senesans geni ile kesiştirildi14. Diferansiyel ekspresyon analizi, DESeq2 (versiyon 1.40.2) kullanılarak R'da (versiyon 4.3.2) gerçekleştirildi ve düzeltilmiş P değerleri Benjamini-Hochberg yöntemi kullanılarak hesaplandı.
TARGET-OS kohortu ve prognostik modelleme
TARGET-OS transkriptomik ve klinik verileri UCSC Xena'dan elde edildi15. Senesansla ilişkili 105 diferansiyel eksprese genin ekspresyon değerleri çıkarıldı. Tam sağkalım süresi, sağkalım durumu ve aday gen ekspresyon verilerine sahip olan, 27 ölüm olayının gerçekleştiği seksen beş hasta çalışmaya dahil edildi. Standartlaştırılmış gen ekspresyon değerleri; tek değişkenli Cox regresyonu16, Kaplan-Meier sağkalım analizi ve zamana bağlı alıcı işletim karakteristiği (ROC) analizi17 kullanılarak analiz edildi. Seçim stabilitesini ve değişken önemini değerlendirmek için LASSO Cox regresyonu18, tekrarlanan LASSO stabilite analizi ve rastgele sağkalım ormanı modellemesi kullanıldı19. Entegre merkez skor ve klinik entegre sıralama, aşağıda detaylandırılan açık ikili kriterler kullanılarak hesaplandı. Sağkalım analizleri R programında survival (versiyon 3.5-7), timeROC (versiyon 0.4), glmnet (versiyon 4.1-8) ve randomForestSRC (versiyon 3.2.2) paketleri kullanılarak gerçekleştirildi. 105 aday genin tek değişkenli Cox taraması için Benjamini-Hochberg yanlış keşif oranı (FDR) düzeltmesi uygulandı ve FDR < 0.05 olan genler istatistiksel olarak anlamlı kabul edildi.
Model ön işlemesi, PPARG gruplandırması ve zamana bağlı ROC analizi
27 ölüm vakasının olduğu 85 hasta arasında, varyansı sıfır olan genler hariç tutulmuş, eksik aday gen ekspresyon değerleri medyan ile tamamlanmış ve her bir aday gen z-skoru ile standardize edilmiştir. Kaplan-Meier analizi için ekspresyon, kohort medyanına göre iki gruba ayrılmıştır: medyanın kesinlikle üzerindeki değerler yüksek ekspresyon grubuna, medyan veya altındaki değerler ise düşük ekspresyon grubuna atanmıştır (PPARG: n = 42 yüksek ve n = 43 düşük). Log-rank testleri çift yönlü olarak gerçekleştirilmiştir. Zamana bağlı ROC analizlerinde, olay nedeni = 1, marjinal ters sansürleme olasılığı ağırlıklandırması, 365, 1.095 ve 1.825 günlük değerlendirme süreleri ve iid = FALSE parametreleri ile timeROC kullanılmıştır. Daha yüksek belirteç değerlerinin tutarlı bir şekilde daha yüksek riski göstermesini sağlamak için, pozitif Cox katsayılarına sahip genler için standardize edilmiş ekspresyon değerleri kullanılmış ve negatif katsayılara sahip koruyucu genler için bu değerler -1 ile çarpılmıştır.
LASSO ve tekrarlanan LASSO
Cox LASSO, glmnet kullanılarak family = "cox", alpha = 1, ön z-skoru standardizasyonu (bu nedenle standardize = FALSE), beşli çapraz doğrulama, type.measure = "deviance" ve 123 rastgele tohumu ile uygulanmıştır. Birincil katsayı çözümü için lambda.min kullanılmıştır. Stabilite analizi, aynı beşli çapraz doğrulamayı 300 kez tekrarlamıştır; b tekrarı için 1000 + b (b = 1,...,300) tohumu kullanılmıştır. Her gen için seçim frekansı, lambda.min değerinde sıfırdan farklı katsayıya sahip tekrarların oranı olarak belirlenmiş; lambda.1se değerindeki sıfırdan farklı seçimler de kaydedilmiştir.
Rastgele sağkalım ormanı
Seed 123, ntree = 1,000, importance = TRUE ve na.action = "na.impute" kullanılarak, randomForestSRC (versiyon 3.2.2) ile standartlaştırılmış 105 aday genin tamamına bir sağkalım ormanı uygulanmıştır. Sağkalım verileri için paket varsayılanları korunmuştur: log-rank bölünme, mtry = 11 (105 öngörücünün karekökünün tavan değeri), minimum terminal düğüm boyutu = 15, nsplit = 10 rastgele bölünme noktası, 0.632 örnekleme oranı ile yerine koymadan örnekleme ve anti-split değişken önemi.
Entegre hub skoru
CellAge ile ilişkili farklı şekilde eksprese edilen 105 aday genin her biri, altı ikili kriterin her biri için bir puan almıştır: (1) farklı ekspresyon/CellAge kesişim üyeliği (puanlama öncesinde düzeltilmiş P < 0.05 şartı arandığı için tüm adaylar bu puanı almıştır); (2) nominal tek değişkenli Cox P < 0.05; (3) Kaplan-Meier log-rank P < 0.05; (4) ortalama 3 ve 5 yıllık zamana bağlı AUC ≥ 0.65; (5) adaylar arasında lambda.min tekrarlı-LASSO seçim frekansının 70. persentil ve üzerinde olması ve > 0 olması; ve (6) adaylar arasında rastgele sağkalım ormanı (random-survival-forest) önem derecesinin 70. persentil ve üzerinde olması ve > 0 olması. Tüm kriterler eşit birim ağırlığa sahip olup 0 ile 6 arasında bir hub skoru vermiştir; ≥ 4 puan alan genler klinik düzeltme aşamasına geçmiştir (18 gen). Tek değişkenli Cox FDR değerleri de raporlanmış ve çoklu test anlamlılığını belirtmek için FDR < 0.05 kullanılmıştır, ancak önceden belirlenmiş puanlama göstergesi için nominal P < 0.05 kullanılmıştır.
Klinik entegreli sıralama
Ekspresyon ve klinik kayıtlar birleştirildikten sonra, düzeltilmiş analizler, tam kovaryat kayıtlarına sahip 40 hastayı ve 13 ölümü kapsadı. Final puanı, başlangıç hub puanına ek olarak yedi kriterin her biri için birer puan verilerek hesaplandı: düzeltilmiş Cox P < 0.05, düzeltilmiş Cox P < 0.10, kesin cerrahi çıkarıldıktan sonra duyarlılık Cox P < 0.05, duyarlılık Cox P < 0.10, ortalama 3 ve 5 yıllık AUC ≥ 0.65, klinik-artı-gen modeline karşı yalnızca klinik model için olabilirlik oran testi P < 0.10 ve delta AIC < 0. 0.05 ve 0.10 eşikleri iç içe geçtiği için, P < 0.05 iki puan katkı sağladı ve böylece belirgin şekilde anlamlı düzeltilmiş ve duyarlılık Cox kanıtlarına daha fazla ağırlık verildi. Toplam puan aralığı 0 ile 13 arasındaydı; eşitlikler önce daha küçük düzeltilmiş Cox P değeri, ardından daha büyük ortalama 3-/5-yıllık AUC ile çözüldü. PPARG, başlangıçtaki altı puanın tamamını ve tüm yedi klinik entegrasyon puanını alarak (13/13) birinci sırada yer aldı. C-indeksi iyileşmesi tanımlayıcı olarak raporlandı ve herhangi bir puan atanmadı.
Klinik ayarlama
Aday hub genler; cinsiyet, yaş, tanı anındaki hastalık durumu, primer tümör bölgesi, spesifik tümör alanı ve kesin cerrahi dahil olmak üzere TARGET-OS klinik değişkenleri ile entegre edildi. Aralarında 13 ölümün bulunduğu, tam ekspresyon ve klinik kayıtları olan kırk hasta klinik ayarlamalı analizlere dahil edildi. Yalnızca klinik değişkenleri içeren Cox modelleri, klinik değişkenlere ek olarak gen ekspresyonunu içeren modellerle karşılaştırıldı. Model iyileşmesini değerlendirmek için C-indeksi, Akaike bilgi kriteri (AIC) ve olasılık oranı testi P değerleri kullanıldı. Cerrahi değişkeni çıkarıldıktan sonra sensitivite analizi gerçekleştirildi.
Fonksiyonel zenginleştirme ve immün mikroçevre analizi
TARGET-OS örnekleri PPARG ekspresyonuna göre tabakalandırılmıştır. PPARG-yüksek ve PPARG-düşük gruplar arasındaki diferansiyel ekspresyon, gen seti zenginleştirme analizi (GSEA)20 için sıralanmış gen listeleri oluşturmak amacıyla kullanılmıştır. Gösterilen yolaklar Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway ve Reactome: Fatty Acids'tır. Toplu bir CellAge senesans skoru hesaplanmış ve PPARG ile senesans genleri veya immün mikroçevre imzaları arasındaki ilişkileri değerlendirmek için Spearman korelasyon analizi kullanılmıştır21. PPARG-yüksek ve PPARG-düşük gruplar arasındaki mikroçevre skorlarındaki farklar, çoklu test düzeltmeli non-parametrik testler kullanılarak değerlendirilmiştir.
Tek hücreli transkriptomik analiz
Yayımlanmış bir insan osteosarkom tek hücreli transkriptomik veri seti; kalite kontrolü, boyut indirgeme, kümeleme ve manuel anotasyonu önceden tamamlanmış bir ön işlemeli nesne kullanılarak analiz edilmiştir22,23,24. Toplam 68.336 hücre ve 32.297 gen dahil edilmiştir. Ana metin yorumlaması için anotasyonlar 13 ana hücre tipine basitleştirilmiştir: B hücreleri, CAF'lar, döngüdeki hücreler, endotel hücreleri, eritroid hücreler, makrofajlar/monositler, malign osteosarkom hücreleri, miyojenik hücreler, nötrofiller, osteoklast benzeri hücreler, perisitler, T/NK hücreleri ve tümörle ilişkili stromal hücreler. PPARG lokalizasyonunu görselleştirmek için boyut indirgeme, özellik ekspresyonu, nokta ve keman grafikleri kullanılmıştır. PPARG-pozitif hücreler, ekspresyonu sıfırdan büyük olan hücreler olarak tanımlanmıştır. Hücre tipleri arasındaki farklar, Benjamini-Hochberg düzeltmesi ile birlikte Kruskal-Wallis ve Wilcoxon sıra toplamı testleri kullanılarak değerlendirilmiştir. Tek hücreli analizler, R programında Seurat (versiyon 5.0.1) kullanılarak gerçekleştirilmiştir.
Uzamsal transkriptomik analiz
Spatyal bir ekspresyon nesnesi oluşturmak için SP_BS3 uzamsal transkriptomik örneği kullanılmıştır25,26. Kalite kontrol eşikleri nFeature_Spatial ≥ 200 ve percent.mt ≤ 30 olarak belirlenmiş ve analiz için 4.572 spot kalmıştır. Veriler normalize edilmiş, 3.000 yüksek değişkenlik gösteren gen seçilmiş; veri ölçeklendirme, temel bileşen analizi, komşuluk grafiği oluşturma, uzamsal spot kümeleme ve boyut indirgeme işlemleri gerçekleştirilmiştir. Döngüsel korelasyonu önlemek amacıyla gen setinden PPARG çıkarıldıktan sonra uzamsal bir CellAge senesans skoru hesaplanmıştır. Endotelyal, perisit, makrofaj/monosit, tümörle ilişkili stromal, malign osteosarkom ve osteoklast benzeri imzalar oluşturulmuş ve skorlanmıştır. PPARG ekspresyonu ile uzamsal skorlar arasındaki ilişkileri değerlendirmek için Spearman korelasyon analizi kullanılmıştır. Her bir spot için öngörülen hücre tipi skorlarını belirlemek amacıyla, tek hücreli veri seti referans, uzamsal veri seti ise sorgu olarak kullanılarak etiket transferi gerçekleştirilmiştir23,24. Uzamsal transkriptomik analizler R dilinde Seurat (versiyon 5.0.1) kullanılarak yapılmış ve tüm uzamsal korelasyon P değerlerine Benjamini-Hochberg FDR düzeltmesi uygulanmıştır.
GSE36001'de harici ekspresyon doğrulaması
GEO veri seti GSE36001, yalnızca bağımsız bir ekspresyon doğrulama kohortu olarak kullanılmıştır; sağkalım sonuçları mevcut olmadığı için prognostik doğrulama amacıyla kullanılmamıştır11,27. Veri seti, 19 osteosarkom örneği ve altı normal kontrol örneği içermekteydi. Prob tanımlayıcılarını gen sembollerine dönüştürmek için GPL6102 platform anotasyonu kullanılmıştır. Birden fazla prob aynı gene eşleştiğinde, ortalama ekspresyonu en yüksek olan prob tutulmuştur. Tümör ve normal gruplar arasındaki diferansiyel ekspresyon limma kullanılarak değerlendirilmiştir28. Analizler, R ortamında limma (versiyon 3.56.2) kullanılarak gerçekleştirilmiş ve düzeltilmiş P değerleri Benjamini-Hochberg yöntemi ile hesaplanmıştır.
qRT-PCR ve Western blot doğrulaması
Deneysel doğrulama, insan osteosarkom hücre hattı 143B ve insan osteoblast hücreleri kullanılarak gerçekleştirilmiştir. Osteosarkom hücreleri; %10 fetal bovine serum ve %1 penisilin-streptomisin ile desteklenmiş Dulbecco's modified Eagle's ortamında, %5 CO₂ içeren nemlendirilmiş bir atmosferde 37 °C'de kültüre edilmiş ve %80-90 konfluense ulaştığında %0,25 trypsin-EDTA ile pasajlanmıştır. İnsan osteoblast hücreleri önerilen kültür koşullarında muhafaza edilmiştir. Tüm hücre hatlarının mikoplazma kontaminasyonu içermediği doğrulanmıştır. qRT-PCR için total RNA, fenol-guanidinyum bazlı bir RNA ekstraksiyon reaktifi kullanılarak ekstrakte edilmiş; RNA konsantrasyonu ve saflığı spektrofotometrik olarak değerlendirilmiştir. Bir mikrogram total RNA, önerilen protokole uygun olarak bir ters transkripsiyon reaktifi kullanılarak ters transkribe edilmiştir. qRT-PCR, floresan DNA-bağlayıcı boya bazlı kimya kullanılarak aşağıdaki döngü koşulları altında gerçekleştirilmiştir: 95 °C'de 30 s başlangıç denatürasyonu, ardından 95 °C'de 5 s ve 60 °C'de 30 s olmak üzere 40 döngü; amplifikasyon özgünlüğünü onaylamak için erime eğrisi analizi yapılmıştır. Her reaksiyon teknik olarak üçte bir şeklinde gerçekleştirilmiş ve üç bağımsız biyolojik deney yürütülmüştür. Dahili kontrol olarak GAPDH kullanılmış ve bağıl PPARG ekspresyonu 2-ΔΔCt yöntemi kullanılarak hesaplanmıştır29. PPARG ileri primer dizisi 5'-CGAAGACATTCCATTCACAAGAACAG-3', geri primer dizisi ise 5'-AGATGCAGGCTCCACTTTGATTG-3' şeklindedir.
PPARG protein ekspresyonunu incelemek için Western blotting yapıldı. Hücreler, proteaz inhibitörleri ile desteklenmiş radyoimmünpresipitasyon analiz tamponunda lize edildi ve protein konsantrasyonları bisinkoninik asit testi kullanılarak belirlendi. Eşit miktardaki proteinler (%10 sodyum dodecil sülfat-poliakrilamid jel elektroforezi ile ayrıştırılarak her kuyucuğa 30 µg gelecek şekilde) poliviniliden diflorür membranlara aktarıldı. Membranlar, oda sıcaklığında 1 saat boyunca %5 yağsız süt ile bloke edildikten sonra PPARG (1:1.000) ve GAPDH (1:5.000) primer antikorları ile 4 °C'de gece boyunca inkübe edildi ve ardından oda sıcaklığında 1 saat boyunca horseradish peroksidaz-konjuge ikincil antikor (1:5.000) ile inkübe edildi. Protein bantları kemilüminesans deteksiyonu kullanılarak görselleştirildi ve üç bağımsız deney gerçekleştirildi. Bant yoğunlukları, görüntü analiz yazılımı kullanılarakle ölçüldü30. Gruplar arası farklar, çift kuyruklu eşleştirilmemiş Student t testleri kullanılarak analiz edildi. Veriler, üç bağımsız deneyden elde edilen ortalama ± standart sapma (SD) olarak sunuldu ve P < 0,05 istatistiksel olarak anlamlı kabul edildi. Deneysel verilerin istatistiksel analizleri, istatistiksel analiz yazılımı (versiyon 9.0) kullanılarak gerçekleştirildi.
İstatistiksel analiz
Aksi belirtilmedikçe, tüm biyoinformatik analizler R (versiyon 4.3.2) kullanılarak gerçekleştirilmiştir. İki yönlü P değerleri < 0.05 olanlar istatistiksel olarak anlamlı kabul edilmiştir. Korelasyonlar, Spearman sıra korelasyon katsayısı (ρ) kullanılarak değerlendirilmiştir. Uygulanabildiği yerlerde, çoklu test düzeltmesi Benjamini-Hochberg FDR yöntemiyle yapılmıştır. Deneysel veriler ortalama ± SD olarak sunulmuş ve iki kuyruklu eşleşmemiş Student t testleri kullanılarak karşılaştırılmıştır. Deneysel istatistiksel analizler, istatistiksel analiz yazılımı (versiyon 9.0) kullanılarak gerçekleştirilmiştir.
Sonuçlar
GSE99671, 105 adet CellAge yaşlanma ile ilişkili diferansiyel eksprese olan gen tanımladı
GSE99671, 18 eşleştirilmiş dokudan alınan 36 örneği içermekteydi. Düşük sayı filtrelemesi sonrası 16.683 gen korundu. Düzeltilmiş P < 0,05 değerinde, 2.248 gen diferansiyel eksprese olmuştur. Düzeltilmiş P < 0,05 ve |log2FC| ≥ 1 şeklindeki daha katı eşik değeri altında, tümörlerde 102'si yukarı regüle ve 492'si aşağı regüle olmak üzere 594 gen anlamlı bulundu (Şekil 1A,B). Diferansiyel eksprese olan 2.248 genin 866 CellAge geni ile kesişimi, 105 yaşlanma ile ilişkili diferansiyel eksprese olan gen verdi (Şekil 1C). PPARG, GSE99671'de log2FC = -0,644, P = 0,00451 ve düzeltilmiş P değeri = 0,0309 ile aşağı regüle olmuştur. 18 çiftin 13'ünde PPARG ekspresyonu normal dokuda tümör dokusuna göre daha yüksek çıkmış olup, eşleştirilmiş Wilcoxon P = 0,0294 olarak belirlenmiştir (Şekil 1D).
Çok modelli prognostik tarama, temel aday gen olarak PPARG'yi belirledi
TARGET-OS'ta, 27 ölüm olayının gerçekleştiği 85 hasta dahil edildi. Tek değişkenli Cox regresyonu, Kaplan-Meier analizi, sağkalım ROC analizi, LASSO, tekrarlanan LASSO ve rastgele sağkalım ormanı modellemesi kullanılarak 105 yaşlanma ile ilgili farklı ekspresyon gösteren genin entegre taraması, klinik düzeltme öncesinde 18 aday merkez gen ortaya çıkardı (Şekil 2A). PPARG, tek değişkenli Cox analizinde genel sağkalım ile ilişkiliydi (HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494, FDR = 0.0447) ve bu durum, daha yüksek PPARG ekspresyonunun daha düşük mortalite riski ile ilişkili olduğunu göstermektedir. Yüksek ve düşük ekspresyon gruplarını karşılaştıran Kaplan-Meier analizi P = 0.00784 sonucunu verdi (Şekil 2B). 1, 3 ve 5. yıllardaki zamana bağlı AUC değerleri sırasıyla 0.603, 0.760 ve 0.776 idi (Şekil 2C). PPARG, 0.920'lik bir tekrarlanan LASSO seçim frekansı ve 0.0398'lik bir rastgele sağkalım ormanı önemi gösterdi (Şekil 2D–F). PPARG'nin önceden belirlenmiş altı tarama kriterinin tamamını karşılaması nedeniyle başlangıç merkez puanı 6/6 idi.
Klinik düzeltme, PPARG'nin prognostik ilişkisini destekledi
Klinik kovaryantlar dahil edildikten sonra PPARG, genel sağkalımla anlamlı derecede ilişkili kalmaya devam etti (düzeltilmiş HR = 0.224, 95% CI = 0.085–0.589, P = 0.00241; Şekil 2G). Yalnızca klinik verilere dayanan modelin C-indeksi 0.707 ve AIC değeri 89.921 idi (Ek Tablo 1). PPARG'nin eklenmesi C-indeksini 0.829'a yükseltti, AIC değerini 78.466'ya düşürdü ve olasılık oran testi uyarınca model uyumunu anlamlı şekilde iyileştirdi (P = 0.000244; Ek Tablo 2, Şekil 2H,I). Definitif cerrahinin çıkarılmasından sonra yapılan duyarlılık analizi, PPARG'nin koruyucu ilişkisini korudu (HR = 0.249, P = 0.00185; Ek Tablo 3, Şekil 2J). PPARG, 13 ile en yüksek klinik entegre skora ulaştı (6 başlangıç hub skoru artı yedi klinik entegrasyon puanı) ve final 3 ve 5 yıllık AUC değerleri sırasıyla 0.770 ve 0.813 olarak görüldü (Şekil 2K).
PPARG ile ilişkili fonksiyonel ve immün mikroçevresel özellikler
PPARG-yüksek ve PPARG-düşük gruplarının karşılaştırıldığı GSEA; Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway ve Reactome: Fatty Acids sonuçlarını göstermiştir (Şekil 3A). Toplu TARGET-OS verilerinde, PPARG'nin genel CellAge senesans skoru ile anlamlı bir korelasyonu saptanmamış ancak (Spearman ρ = 0.022, P = 0.837; Şekil 3B), birkaç bireysel CellAge geni ile korelasyon gösterdiği görülmüştür (Şekil 3C). İmmün mikroçevre analizi; PPARG ile makrofajlar (ρ = 0.485, FDR = 2.7 × 10⁻⁵), CD8 T hücreleri (ρ = 0.410, FDR = 5.88 × 10⁻⁴), osteoklast benzeri imza (ρ = 0.383, FDR = 0.00120), nötrofiller (ρ = 0.376, FDR = 0.00120) ve dendritik hücreler (ρ = 0.370, FDR = 0.00123) arasında pozitif korelasyonlar olduğunu göstermiştir. FDR düzeltmesi sonrası, PPARG-yüksek tümörlerin daha yüksek osteoklast benzeri, makrofaj, CD8 T-hücresi, dendritik hücre, monosit, nötrofil, NK hücresi ve endotel hücre imzaları sergilediği görülmüştür (Ek Tablo 4, Şekil 3D,E).
Tek hücre transkriptomiği, PPARG'nin vasküler ve mikroçevresel bölmelerde lokalize olduğunu göstermiştir
Tek hücre veri seti 68.336 hücre ve 32.297 gen içermekteydi. PPARG ekspresyonu hücre tipleri arasında anlamlı farklılıklar gösterdi (Şekil 4A). En yüksek ortalama ekspresyon endotel hücrelerinde (ortalama ekspresyon = 0,540; pozitif oran = %44,33), perisitlerde (ortalama ekspresyon = 0,439; pozitif oran = %41,61), makrofajlarda/monositlerde (ortalama ekspresyon = 0,363; pozitif oran = %31,62) ve tümörle ilişkili stromal hücrelerde (ortalama ekspresyon = 0,361; pozitif oran = %44,10; Şekil 4B–E) gözlemlendi. Malign osteosarkom hücrelerinin bir alt kümesi PPARG eksprese etti (ortalama ekspresyon = 0,163; pozitif oran = %16,70), ancak malign osteosarkom hücrelerindeki ekspresyon diğer hücrelerinkinden anlamlı derecede yüksek değildi (FDR = 0,151). Bu bulgular, osteosarkomdaki PPARG ekspresyonunun malign hücrelerle sınırlı olmaktan ziyade, ağırlıklı olarak vasküler, miyloid ve stromal mikroçevresel durumları yansıttığını ortaya koymuştur (Şekil 4F).
Uzamsal transkriptomik, PPARG'yi senesansla ilişkili uzamsal durumlar ve vasküler nişlerle ilişkilendirdi
Kalite kontrol sonrası, 4.572 SP_BS3 uzamsal noktası tutuldu ve yedi uzamsal küme altında gruplandırıldı (Şekil 5A). Şekil 5B, nFeature_Spatial'ın (nokta başına tespit edilen genler) uzamsal dağılımını göstermektedir. Ayrı olarak, 866 CellAge geninden 845'i uzamsal ekspresyon matrisi ile eşleşmiştir (%97,58). PPARG odaklı uzamsal ekspresyon göstermiştir (Şekil 5C). PPARG çıkarıldıktan sonra hesaplanan CellAge uzamsal senesans skoru, PPARG ekspresyonu ile zayıf ancak istatistiksel olarak anlamlı pozitif bir korelasyon göstermiştir (ρ = 0,0692, P = 3,0 × 10⁻⁶, FDR = 1,9 × 10⁻⁵; Şekil 5D). Uzamsal niş skorlaması, PPARG ile endotelyal skor (ρ = 0,0433, FDR = 0,00592) ve perisit skoru (ρ = 0,0367, FDR = 0,0181) arasında pozitif korelasyonlar gösterirken; PPARG'nin malign osteosarkom skoru (ρ = -0,0592, FDR = 0,000219) ve tümör stromal skoru (ρ = -0,0531, FDR = 0,000774) ile negatif korelasyon gösterdiği belirlenmiştir (Ek Tablo 5, Şekil 5E). Etiket aktarım analizi de benzer şekilde endotelyal tahmin skoru (ρ = 0,0507, FDR = 0,00120) ve perisit tahmin skoru (ρ = 0,0394, FDR = 0,0123) ile pozitif korelasyonların yanı sıra, malign osteosarkom hücre tahmin skoru (ρ = -0,0699, FDR = 1,1 × 10⁻⁵) ile negatif bir korelasyon göstermiştir (Şekil 5F–H).
Ekspresyon verileri ve deneysel doğrulama PPARG downregülasyonunu destekledi
GSE36001; 19 osteosarkom örneği ve altı normal kontrol grubu içermektedir. PPARG, osteosarkomda anlamlı düzeyde downregüle olmuştur (logFC = -1.429, P = 0.00730, düzeltilmiş P değeri = 0.0435; Şekil 6A). Hücre tabanlı doğrulamada, qRT-PCR ile belirlendiği üzere PPARG mRNA ekspresyonu osteosarkom 143B hücrelerinde, insan osteoblast hücrelerine göre anlamlı derecede düşük bulunmuştur (P < 0.001; Şekil 6B). Western blotting ile yapılan incelemede, 143B hücrelerinde PPARG protein ekspresyonunun da anlamlı şekilde azaldığı görülmüştür (P < 0.01; Şekil 6C,D). Bu harici kohort, mRNA ve protein düzeyindeki bulgular, osteosarkomda azalan PPARG ekspresyonunu tutarlı bir şekilde desteklemiştir. GSE36001 sağkalım sonuçlarını içermediği için yalnızca harici ekspresyon doğrulaması sağlamış, bağımsız prognostik doğrulama sunmamıştır.
VERİ ERİŞİLEBİLİRLİĞİ:
Bu çalışmada kullanılan tüm veri setleri kamuya açıktır. GSE99671 ve GSE36001, Gene Expression Omnibus veri tabanından (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001) elde edilmiştir. TARGET-OS transkriptomik ve klinik verileri UCSC Xena'dan (https://xena.ucsc.edu/) indirilmiştir. Senesans ile ilişkili genler, Human Ageing Genomic Resources'ın bir parçası olan CellAge: The Database of Cell Senescence Genes'den (https://genomics.senescence.info/cells/) alınmıştır. İnsan osteosarkom tek hücre ve mekansal transkriptomik veri setleri, yayınlanmış atlas ve buna bağlı GitHub deposundan (https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas) elde edilmiştir. Zenginleştirme analizi için gen setleri MSigDB'den (https://www.gsea-msigdb.org/gsea/msigdb/) alınmıştır. Bu çalışmada oluşturulan işlenmiş veriler ve rapor edilen sonuçları yeniden üretmek için kullanılan analiz scriptleri derlenmiş ve Ek Dosya 1 olarak sunulmuştur.
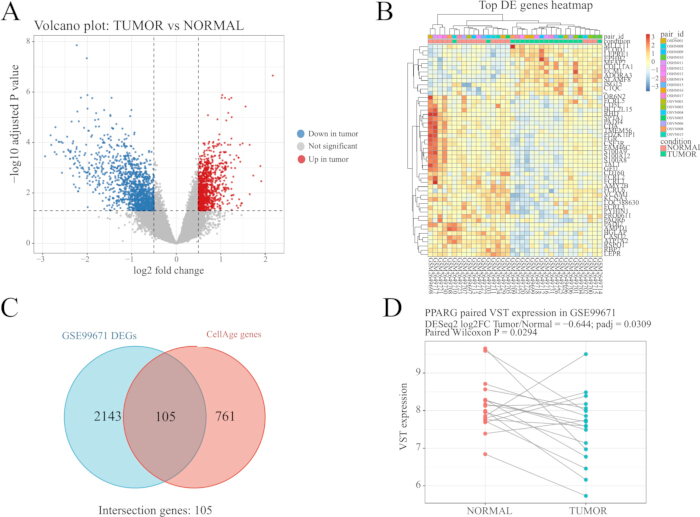
Şekil 1: Osteosarkomda diferansiyel eksprese olan genlerin ve CellAge kaynaklı senesansla ilişkili aday genlerin belirlenmesi. (A) GSE99671 veri setindeki osteosarkom dokuları ile eşleşen tümör dışı kontrol dokuları arasındaki diferansiyel eksprese olan genleri gösteren volkan grafiği. Anlamlı düzeyde artmış (upregulated) ve azalmış (downregulated) genler, önceden tanımlanmış kesme kriterlerine göre vurgulanmıştır. (B) GSE99671'deki osteosarkom ve eşleşen kontrol örnekleri genelinde temsilci diferansiyel eksprese olan genlerin ekspresyon modellerini gösteren ısı haritası. (C) GSE99671 diferansiyel eksprese olan genler ile CellAge senesansla ilişkili genler arasındaki kesişimi gösteren Venn diyagramı. (D) GSE99671'deki osteosarkom dokuları ile eşleşen tümör dışı kontrol dokuları arasında PPARG'nin eşleşmiş ekspresyon karşılaştırması. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
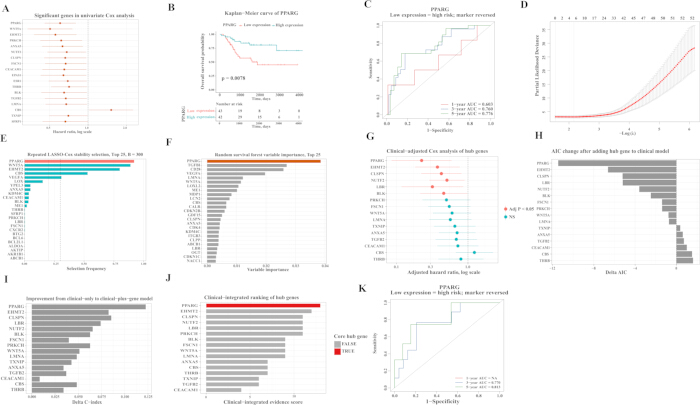
Şekil 2: Makine öğrenimi ve klinik olarak ayarlanmış sağkalım analizleri, PPARG'nin osteosarkomda temel bir senesansla ilişkili prognostik hub gen olduğunu belirlemektedir. (A) TARGET-OS kohortundaki aday senesansla ilişkili genler için tek değişkenli Cox regresyon sonuçlarını gösteren Forest grafiği. (B) PPARG-yüksek ve PPARG-düşük hastalar arasında genel sağkalımı karşılaştıran Kaplan–Meier sağkalım eğrisi. (C) PPARG'nin genel sağkalım için öngörü performansını değerlendiren zamana bağlı ROC eğrileri. (D) Prognostik aday genlerin seçimi için LASSO Cox regresyonunun çapraz doğrulama eğrisi. (E) 300 beşli tekrarlama boyunca lambda.min seçim frekanslarını gösteren tekrarlanan LASSO stabilite analizi. (F) 1.000 ağaçtan elde edilen değişken önem skorlarını gösteren rastgele sağkalım ormanı analizi. (G) Aday hub genler için klinik olarak ayarlanmış Cox regresyon sonuçlarını gösteren Forest grafiği. (H) Münferit hub genlerin klinik modele eklenmesinden sonraki AIC değişimleri. (I) Münferit hub genlerin klinik modele eklenmesinden sonraki C-indeksi iyileşmesi. (J) Aday Hub genin nihai klinik-entegre skor (aralık 0–13) sıralaması. (K) 40 hastalık klinik-analiz alt kümesinde PPARG'nin 3 ve 5 yıllık AUC değerlerini gösteren zamana bağlı ROC eğrileri; 1 yıllık AUC tahmin edilememiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
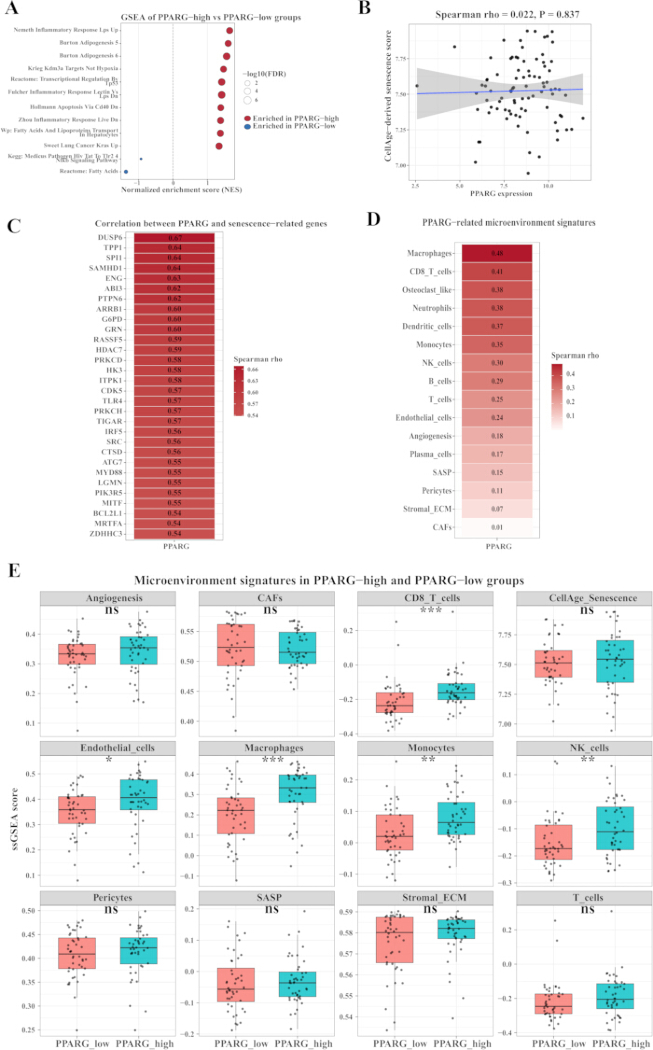
Şekil 3: PPARG ile ilişkili fonksiyonel zenginleştirme ve immün mikroçevre analizi. (A) PPARG-yüksek ve PPARG-düşük grupları karşılaştıran ve Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway ve Reactome: Fatty Acids yollarını gösteren GSEA balon grafiği. (B) Toplu TARGET-OS verilerinde PPARG ile genel CellAge senesans skoru arasındaki korelasyon. (C) PPARG ile bireysel CellAge genleri arasındaki korelasyonlar. (D) PPARG ile immün mikroçevre imzaları arasındaki korelasyonlar. (E) PPARG-yüksek ve PPARG-düşük grupları arasındaki mikroçevre skorları farkları. Korelasyonlar Spearman sıra korelasyon katsayısı (ρ) kullanılarak değerlendirilmiş ve düzeltilmiş P değerleri Benjamini-Hochberg yöntemi kullanılarak hesaplanmıştır. Kısaltmalar: GSEA = gen seti zenginleştirme analizi; NF-κB = nükleer faktör kappa-B; JAK-STAT = Janus kinaz-sinyal iletici ve transkripsiyon aktivatörü; IL-12 = interlökin-12; FDR = yanlış keşif oranı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
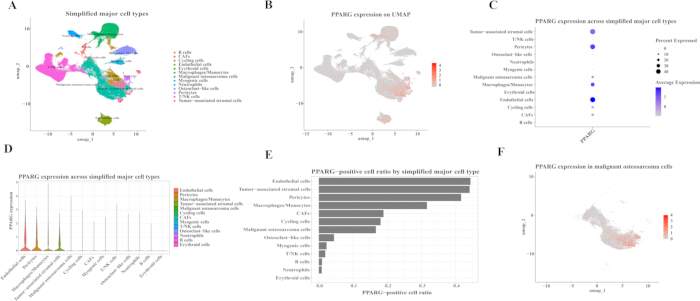
Şekil 4: Osteosarkom tek hücre transkriptomik verilerinde hücresel bölmeler genelinde PPARG lokalizasyonu. (A) Basitleştirilmiş manuel anotasyon sonrası insan osteosarkom tek hücre transkriptomik veri setindeki ana hücre tiplerinin UMAP görselleştirmesi. (B) Tek hücreler genelinde PPARG ekspresyonunun küresel dağılımını gösteren FeaturePlot. (C) Ana hücre tipleri genelinde PPARG ekspresyonunu gösteren DotPlot. (D) Farklı hücre tiplerindeki PPARG ekspresyon seviyelerini gösteren keman grafiği (violin plot). (E) Her bir ana hücre tipindeki PPARG-pozitif hücrelerin oranını gösteren sütun grafiği. (F) Malign osteosarkom hücrelerinde PPARG ekspresyonunu gösteren UMAP görselleştirmesi. Kısaltma: UMAP = uniform manifold approximation and projection. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
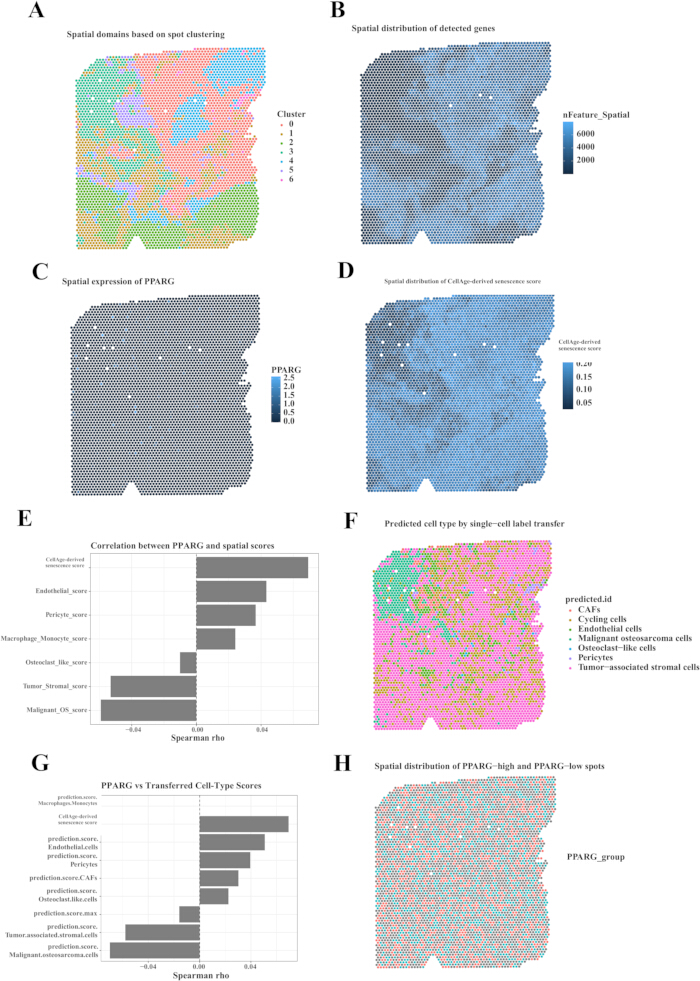
Şekil 5: Osteosarkomda PPARG'nin konumsal transkriptomik lokalizasyonu ve yaşlanma ile ilişkili konumsal özellikler. (A) SP_BS3 osteosarkom konumsal transkriptomik kesitinde transkriptomla tanımlanmış kümelerin konumsal dağılımı. (B) nFeature_Spatial ile gösterilen, nokta başına saptanan genlerin konumsal dağılımı. (C) SP_BS3 noktaları genelinde PPARG'nin konumsal ekspresyon paterni. (D) CellAge kaynaklı yaşlanma skorunun konumsal dağılımı. (E) PPARG ekspresyonu ile konumsal CellAge kaynaklı yaşlanma skoru veya hücre ekolojik niş skorları arasındaki korelasyon analizi. (F) Her bir konumsal nokta için tek hücre kaynaklı baskın hücre tipini gösteren etiket transferi tahmin haritası. (G) PPARG ekspresyonu, CellAge kaynaklı yaşlanma skoru ve etiket transferi kaynaklı hücre tipi tahmin skorları arasındaki korelasyon analizi. (H) PPARG-yüksek ve PPARG-düşük noktaların konumsal dağılımı. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
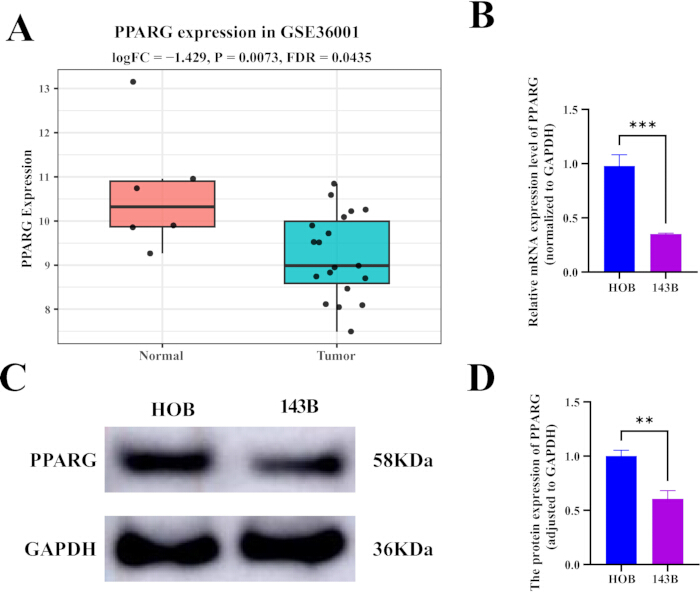
Şekil 6: Osteosarkomda PPARG downregülasyonunun harici ekspresyonu ve deneysel doğrulaması. (A) GSE36001 veri setindeki osteosarkom örneklerinde (n = 19) ve normal kontrol örneklerindeki (n = 6) PPARG ekspresyon seviyelerini gösteren kutu grafiği. (B) İnsan osteosarkom 143B hücreleri ve insan osteoblast kontrol hücrelerinde PPARG mRNA ekspresyonunun qRT-PCR analizi. (C) İnsan osteoblast kontrol hücreleri ve osteosarkom 143B hücrelerinde PPARG ve GAPDH protein ekspresyonunu gösteren temsilci Western blot. Yükleme kontrolü olarak GAPDH kullanılmıştır. (D) GAPDH'ye göre normalize edilmiş relatif PPARG protein seviyelerini gösteren Western blot bantlarının densitometrik kantifikasyonu. (B) ve (D) bölümlerinde veriler, üç bağımsız deneyden elde edilen ortalama ± SD olarak sunulmuştur. İki kuyruklu eşleştirilmemiş Student’s t-testi kullanılarak belirlendiği üzere, insan osteoblast kontrol grubuna kıyasla P < 0.01 ve P < 0.001. Kısaltmalar: qRT-PCR = kantitatif ters transkripsiyon polimeraz zincir reaksiyonu; GAPDH = gliseraldehit-3-fosfat dehidrogenaz; SD = standart sapma. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Ek Tablo 1: TARGET-OS kohortunda yalnızca klinik verilere dayalı Cox modelinin performansı. Cinsiye, yaş, tanı anındaki hastalık durumu, primer tümör bölgesi, spesifik tümör alanı ve kesin cerrahi durum dahil olmak üzere yalnızca klinik değişkenler kullanılarak oluşturulan Cox modelinin C-indeksi, AIC ve model özeti. Kısaltma: AIC = Akaike bilgi kriteri. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 2: Yalnızca klinik ve klinik-artı-gen Cox modelleri arasındaki karşılaştırma. Bireysel aday merkez genlerin klinik modele eklenmesinin ardından elde edilen C-indeksi, AIC, olabilirlik oran testi istatistikleri ve model iyileştirme metriklerini içeren model karşılaştırma sonuçları. Kısaltma: AIC = Akaike bilgi kriteri. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 3: Kesin cerrahi değişkeninin çıkarılmasından sonra yapılan duyarlılık analizi. Kesin cerrahi değişkeni düzeltilmiş klinik modelden çıkarıldıktan sonra, aday hub genlerin, özellikle PPARG'nin prognostik ilişkilerinin sabit kalıp kalmadığını değerlendiren duyarlılık Cox regresyon sonuçları. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 4: TARGET-OS'ta PPARG ile ilişkili immün ve stromal mikroçevre imzaları. PPARG ekspresyonu ile immün, stromal, vasküler, inflamatuar ve SASP ile ilişkili ssGSEA imzaları arasındaki korelasyon ve grup karşılaştırma sonuçları; Spearman korelasyon katsayıları, P değerleri, düzeltilmiş P değerleri ve PPARG-yüksek ile PPARG-düşük karşılaştırmalarını içerir. Kısaltmalar: SASP = senesansla ilişkili salgılayıcı fenotip; ssGSEA = tek örnek gen seti zenginleştirme analizi. Bu dosyayı indirmek için lütfen buraya tıklayın.
Ek Tablo 5: SP_BS3'te PPARG'nin mekansal transkriptomik korelasyon analizi. SP_BS3 osteosarkom mekansal transkriptomik kesitinde, PPARG ekspresyonu ile mekansal CellAge kaynaklı senesans skoru, hücre ekolojik niş skorları ve etiket aktarımı kaynaklı hücre tipi öngörü skorları arasındaki korelasyon sonuçları. Lütfen bu dosyayı indirmek için buraya tıklayın.
Tartışma
Bu çalışma; diferansiyel ekspresyon analizi, CellAge gen kesişimi, TARGET-OS sağkalım modellemesi, klinik ayarlama, multi-omik lokalizasyon ve deneysel doğrulamayı entegre ederek PPARG'yi osteosarkomda yaşlanma ile ilişkili bir aday prognostik gen olarak belirlemiştir. Bu analitik çerçeve, moleküler bilgiye dayalı osteosarkom araştırmalarına ve yaşlanma ile ilgili biyolojiyi yorumlamak için küratörlü yaşlanma-gen kaynaklarına yönelik mevcut vurgu ile uyumludur14,31. PPARG, normal dokuya kıyasla osteosarkomda downregüle olmuştur ve düşük PPARG ekspresyonu TARGET-OS'ta daha kötü genel sağkalım ile ilişkilendirilmiştir. Bu bulgular, PPARG'nin osteosarkomda yalnızca transkripsiyonel olarak değişmediğini, aynı zamanda klinik olarak ilgili prognostik bilgiler de taşıyabileceğini göstermiştir. Ancak, aday seçimi ve model değerlendirmesi aynı TARGET-OS kohortunda (85 hasta, 27 ölüm olayı) gerçekleştirildiği için, model performansında gözlenen iyileşme optimizme ve aşırı öğrenmeye (overfitting) açıktır; bu nedenle, PPARG'nin prognostik değeri, bağımsız bir osteosarkom sağkalım kohortunda doğrulanana kadar hipotez oluşturucu olarak değerlendirilmelidir. Buna rağmen, deneysel osteosarkom çalışmalarının hem PPAR-gamma/nükleer reseptör modülasyonunun antitümör etkilerini hem de hastalık progresyonunu destekleyebilecek PPARG ile ilişkili osteoklast programlarını rapor etmiş olması nedeniyle, PPARG biyolojisi bağlama bağlı bir şekilde yorumlanmalıdır32,33,34.
Önemli bir nüans, PPARG'nin genel CellAge skoru için basit bir vekil olarak yorumlanmaması gerektiğidir. Bulk TARGET-OS verilerinde PPARG, küresel CellAge senesans skoru ile anlamlı bir korelasyon göstermemişken, uzamsal transkriptomikte PPARG, PPARG hariç tutulduktan sonra hesaplanan CellAge skoru ile zayıf ancak anlamlı bir korelasyon göstermiştir. Bu fark, bulk verilerdeki hücre bileşimi etkilerini, senesans gen setlerinin çok fonksiyonlu doğasını ve uzamsal noktalardaki mikroçevresel nişlerin lokal zenginleşmesini yansıtmış olabilir. Konsensüs ve transkriptomik çalışmalar, hücresel senesansın heterojen, dinamik; hücre tipine, stresöre ve doku bağlamına bağımlı olduğunu, SASP programlarının ise kanser progresyonu sırasında zıt etkiler gösterebileceğini vurgulamıştır25,35,36,37. Bu nedenle PPARG, kanıtlanmış bir senesans sürücüsü olmaktan ziyade, ihtiyatlı bir yaklaşımla CellAge kaynaklı senesansla ilişkili prognostik bir gen olarak tanımlanmıştır. Buna göre, PPARG'nin senesansla ilişkili olarak adlandırılması, senesansta kanıtlanmış mekanistik bir katılımdan ziyade CellAge gen seti üyeliğini yansıtmaktadır ve PPARG, genel senesans aktivitesi için kantitatif bir vekil olarak kullanılmamalıdır.
Daha genel olarak, bu mekansal sonuçlar istatistiksel anlamlılık ile biyolojik ilgi arasındaki farkı örneklendirmiştir. 4.572 mekansal nokta ile, çok zayıf korelasyonlar bile geleneksel anlamlılık eşiklerini aşabilmektedir; örneğin, PPARG ile mekansal CellAge yaşlanma skoru arasındaki korelasyon (ρ = 0,0692), varyansın yalnızca yaklaşık %0,48'ini açıklamasına rağmen, nokta sayısının fazlalığının sağladığı yüksek istatistiksel güç nedeniyle 3,0 × 10⁻⁶ P değerine ulaşmıştır. Bu nedenle, nokta düzeyindeki bu ilişkilere istatistiksel olarak tespit edilebilir ancak biyolojik olarak mütevazı, hipotez oluşturucu sinyaller olarak bakılmalı ve biyolojik yorumlamaya sadece P değerleri değil, etki büyüklükleri rehberlik etmelidir. Büyük nokta düzeyi veri setlerindeki istatistiksel anlamlılık, güçlü biyolojik etkilerle eşdeğer tutulmamalıdır.
Tek hücreli ve uzamsal analizler, PPARG için biyolojik bir bağlam sağlamıştır. PPARG; endotel hücreleri, perisitler, makrofajlar/monositler ve tümörle ilişkili stromal hücrelerde zenginleşmiş olup, uzamsal olarak endotel ve perisit skorları ile ilişkili bulunmuştur. Bu sonuçlar, PPARG tarafından taşınan prognostik bilgilerin, osteosarkomdaki vasküler ve mikroçevresel kompartmanlarla bağlantılı olabileceğini göstermiştir. Bu yorum, güncel osteosarkom tek hücreli/uzamsal atlaslarıyla ve immün, vasküler ve stromal nişlerin tümör heterojenliğini, tedavi yanıtını ve progresyonu şekillendirdiğine dair daha geniş kanıtlarla uyumludur25,38,39. Malign osteosarkom hücreleri PPARG'yi yalnızca hücrelerin bir alt kümesinde eksprese ettiği ve diğer hücrelere göre anlamlı derecede daha yüksek bir ekspresyon göstermediği için, yalnızca tümör hücresine odaklanan bir yorum eksik kalacaktır. Aksine, GSE99671 ve GSE36001'de gözlemlenen dökme (bulk) düzeyindeki PPARG downregülasyonu, malign osteosarkom hücrelerindeki gerçek bir downregülasyondan ziyade, tümör ve normal dokular arasındaki stromal, vasküler, kemik iliği, adipojenik veya immün hücre kompozisyonundaki farklılıkları kısmen yansıtmış olabilir. Dökme analizlerde tümör saflığı ve hücre tipi bolluğu açıkça ayarlanmadığı için bu olasılık dışlanamamış ve hedeflenmiş bir inceleme gerektirmiştir.
Fonksiyonel ve immün mikroçevre analizleri bu yorumla tutarlılık göstermiştir. PPARG; makrofaj, CD8 T hücresi, dendritik hücre, nötrofil, NK hücresi ve endotelyal imzalarla korelasyon göstermiş ve GSEA; inflamasyon, NF-κB, JAK-STAT/IL-12 sinyalleme, TP53 regülasyonu ve DNA hasarı kontrol noktalarıyla ilgili yolakları vurgulamıştır. Birlikte değerlendirildiğinde bu sonuçlar, PPARG'nin senesansla ilişkili stres, immün infiltrasyon ile vasküler ve stromal kompartmanları içeren kompozit bir mikroçevresel durumu işaret edebileceğini düşündürmüştür. PPAR-gamma'nın, AP-1, STAT ve NF-κB ile ilişkili transkripsiyonel programlar üzerindeki etkiler de dahil olmak üzere makrofaj/monosit inflamatuar aktivasyonunu baskılamada kanıtlanmış rollere sahip olması ve osteosarkom immün mikroçevresinin hem tümör destekleyici hem de tümör baskılayıcı fonksiyonları olan myeloid, lenfoid ve vasküler elementler içermesi nedeniyle bu yorum biyolojik olarak makuldür38,40,41. Bu tek hücreli ve mekansal gözlemler tanımlayıcı ve hipotez oluşturucu niteliktedir; tek başlarına vasküler niş mekanizmalarını, senesans programlarını veya prognostik yolakları kanıtlamamaktadır.
Bazı kısıtlamaların kabul edilmesi gerekmektedir. İlk olarak, temel prognostik analiz, sınırlı örneklem büyüklüğü ve olay sayısına sahip retrospektif TARGET-OS kamu kohortuna dayanıyordu; bu nedenle, PPARG'nin prognostik değeri, kabul görmüş tümör belirteci raporlama ve doğrulama ilkelerine uygun olarak bağımsız kohortlarda doğrulanmalıdır42. Özellikle, aday taraması 27 ölümle sonuçlanan 85 TARGET-OS hastasında gerçekleştirilirken, klinik olarak düzeltilmiş model değerlendirmesinde 13 ölümle sonuçlanan örtüşen 40 hastalık alt küme kullanılmıştır. Her iki analiz de aynı kaynak kohorttan türetildiği için, bildirilen C-indeksi artışı (0,707'den 0,829'a) ve AIC azalması muhtemelen iyimserdir. PPARG'nin prognostik değerini harici olarak doğrulamak için bağımsız bir sağkalım kohortu mevcut değildi; GSE36001 yalnızca tümör-normale karşı ekspresyon doğrulaması için kullanılmıştır. Ek olarak, entegre hub skoru, doğrulanmış bir prognostik araçtan ziyade keşifsel bir dahili sıralama sezgiseliydi. İkinci olarak, uzamsal transkriptomik analiz tek bir SP_BS3 örneğine dayanıyordu; korelasyonlar istatistiksel olarak anlamlı olsa da, etki büyüklükleri küçüktü ve ek uzamsal örneklerde doğrulanması gerekmektedir. Özellikle, bağımsız hastalardan alınan uzamsal transkriptomik örnek sayısını artırmak, bu zayıf ilişkilerin daha güçlü tahminlerini elde etmek için temel olacaktır ve daha büyük uzamsal kohortlara dayalı çalışmalara ihtiyaç vardır. Uzamsal transkriptomik değerli bir in situ moleküler bağlam sağlar, ancak yorumlama platform çözünürlüğü, örnekleme stratejisi, doku kalitesi ve hesaplamalı entegrasyon seçimlerinden etkilenmeye devam etmektedir43. Ayrıca, uzamsal analiz, basitleştirilmiş anotasyonlara sahip önceden işlenmiş bir kamu tek hücre nesnesine ve hesaplamalı skorlama ile etiket aktarımına dayanıyordu; minimal etki büyüklükleri göz önüne alındığında, bu veriler vasküler nişler veya yaşlanma programları hakkında mekanistik iddialardan ziyade tanımlayıcı lokalizasyon ifadelerini desteklemiştir. Üçüncü olarak, deneysel doğrulama 143B osteosarkom hücre hattına ve insan osteoblastlarına dayanıyordu; ek osteosarkom hücre hatlarına ve klinik örneklere ihtiyaç vardır ve tek bir hücre hattındaki doğrulama hücre tipi özgüllüğünü, klinik prognostik ilgiyi veya yaşlanma biyolojisini kanıtlayamaz. Dördüncü olarak, bu çalışma nedensellikten ziyade ilişkiyi ortaya koymuştur. PPARG'nin yaşlanma ile ilgili programları, vasküler nişleri veya tümör progresyonunu doğrudan düzenleyip düzenlemediğini belirlemek için osteosarkom hücrelerinde ve mikroçevresel modellerde PPARG'nin fonksiyonel perturbasyonu gerekecektir. Beşinci olarak, yaşlanma ile ilişkili olma durumu CellAge gen seti ile örtüşme yoluyla tanımlanmıştır ve PPARG, TARGET-OS'taki bulk CellAge yaşlanma skoru ile korelasyon göstermemiştir. Dahası, bulk tümör-normale karşı karşılaştırmalar tümör saflığı veya hücre tipi kompozisyonu için düzeltilmemiştir, bu nedenle gözlemlenen aşağı regülasyon, malign hücreye özgü değişikliklerden ziyade kısmen mikroçevresel kompozisyondaki farklılıkları yansıtıyor olabilir.
PPARG, düşük ekspresyonu TARGET-OS kohortunda elverişsiz genel sağkalım ile ilişkilendirilen CellAge kaynaklı bir gendir. Toplu osteosarkom karşılaştırmalarında downregülasyona uğraması, vasküler, myeloid ve stromal kompartmanlardaki zenginleşmesiyle birlikte, toplu PPARG seviyelerinin malign hücreye özgü ekspresyondan ziyade kısmen mikroçevresel hücre kompozisyonunu yansıtabileceğini göstermektedir. Tek hücre ve uzamsal bulgular tanımlayıcıdır ve prognostik ilişki sağkalım için bağımsız olarak doğrulanmamıştır; bu nedenle sağkalım sonuçlarını içeren harici bir kohortta doğrulanması gerekmektedir. Bu bulgular, harici doğrulama ve fonksiyonel çalışmalar sonucunda PPARG'yi, osteosarkomda prognostik değerlendirme ve senesansla ilişkili mikroçevreler üzerine araştırmalar için aday bir biyobelirteç olarak önermektedir. Uzamsal transkriptomikte, PPARG ile senesansla ilişkili veya vasküler niş skorları arasındaki korelasyonlar, uzamsal nokta sayısının fazlalığı nedeniyle istatistiksel olarak anlamlı olsa da etki büyüklüğü açısından zayıftır ve bu nedenle dikkatle yorumlanmalıdır.
Açıklamalar
Yazarlar herhangi bir çıkar çatışması beyan etmemektedir.
YAZAR KATKILARI:
Yongwen Li ve Wentao Qin çalışmayı tasarladı ve kurguladı. Yongwen Li biyoinformatik ve hesaplamalı analizleri gerçekleştirdi. Tuo Liang deneysel doğrulamayı yaptı. Rubiao Qiu ve Zide Zhang şekillerin hazırlanmasına katkıda bulundu. Rubiao Qiu ve Zide Zhang çalışmayı denetledi ve makaleyi kritik olarak gözden geçirdi. Tüm yazarlar nihai makaleyi inceledi ve onayladı
Teşekkürler
Yazarlar, bu çalışmayı mümkün kılan halka açık veri setlerini ve kaynakları sağladıkları için GEO, TARGET-OS, UCSC Xena, CellAge, MSigDB ve insan osteosarkom tek hücreli ve mekansal transkriptomik atlas projelerinin araştırmacılarına ve katkıda bulunanlarına teşekkür ederler. Bu çalışma, Guangxi Doğa Bilimleri Vakfı (No. 2023GXNSFAA026111) tarafından desteklenmiştir.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Anti-GAPDH primer antikoru | Proteintech Group, Wuhan, China | 10494-1-AP | Western blottingde yükleme kontrolü olarak GAPDH'yi tespit etmek için kullanılan primer antikoru; dilüsyon 1:5.000. |
| Anti-PPARG primer antikoru | Proteintech Group, Wuhan, China | 16643-1-AP | Western blotting ile PPARG proteininin tespiti için kullanılan primer antikoru; dilüsyon 1:1.000. |
| BCA protein analiz kiti | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PC0020 | Elektroforez öncesinde toplam protein konsantrasyonunu belirlemek için kullanılan kolorimetrik analiz. |
| DESeq2 | Bioconductor | Version 1.40.2 | Sayı tabanlı transkriptomik verilerin diferansiyel gen ekspresyon analizi için kullanılan R paketi. |
| Dulbecco modifiye Eagle ortamı (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | 11995 | 143B osteosarkom hücrelerinin kültürü için kullanılan bazal kültür ortamı. |
| ECL tespit reaktifi | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PE0010 | Western blottingde HRP-konjuge antikorların tespiti için kullanılan kemilüminesans substrat. |
| Fetal sığır serumu (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), Huzhou, Zhejiang, China | 11011-8611 | Hücre büyümesini ve canlılığını desteklemek için kültür ortamına eklenen serum takviyesi. |
| glmnet | CRAN | Version 4.1-8 | LASSO ve elastic-net modelleme dahil olmak üzere cezalandırılmış regresyon analizleri için kullanılan R paketi. |
| GraphPad Prism | GraphPad Software, San Diego, CA, USA | Version 9.0 | İstatistiksel analiz, grafik oluşturma ve deneysel verilerin görselleştirilmesi için kullanılan yazılım. |
| HRP-konjuge sekonder antikoru | Proteintech Group, Wuhan, China | SA00001-2 | Western blot tespiti için kullanılan horseradish peroksidaz-konjuge sekonder antikoru; dilüsyon 1:5.000. |
| İnsan osteoblast hücreleri | Cell Applications, Inc., San Diego, CA, USA | 406-05A | Malign olmayan karşılaştırma/kontrol hücre tipi olarak kullanılan primer insan osteoblast hücreleri. |
| İnsan osteosarkom 143B hücre hattı | American Type Culture Collection (ATCC), Manassas, VA, USA | CRL-8303 | In vitro doğrulama deneyleri ve moleküler analizler için kullanılan insan osteosarkom hücre hattı. |
| ImageJ | National Institutes of Health (NIH), USA | Version 1.53 | Deneysel görüntülerin kantitatif analizi için kullanılan görüntü analiz yazılımı. |
| limma | Bioconductor | Version 3.56.2 | Diferansiyel ekspresyon analizi ve doğrusal model tabanlı istatistiksel testler için kullanılan R paketi. |
| Penisilin-streptomisin | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | P1400 | Bakteriyel kontaminasyonu azaltmak için hücre kültürü ortamında kullanılan antibiyotik takviyesi. |
| PPARG ve GAPDH primerleri | Sangon Biotech (Shanghai) Co., Ltd., Shanghai, China | Custom synthesis; sequences provided in the Methods | PPARG ve GAPDH ekspresyonunun qPCR analizi için kullanılan özel oligonükleotid primerler. |
| PVDF membranlar, 0.45 µm | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | YA1701 | Western blotting sırasında protein transferi için kullanılan membranlar. |
| R istatistik yazılımı | R Foundation for Statistical Computing, Vienna, Austria | Version 4.3.2 | Biyoenformatik analizler, model oluşturma ve görselleştirme için kullanılan istatistiksel hesaplama ortamı. |
| randomForestSRC | CRAN | Version 3.2.2 | Rastgele sağkalım ormanı modelleme ve özellik önem analizi için kullanılan R paketi. |
| Ters transkripsiyon kiti | Beyotime Biotech Inc., Shanghai, China | D7168M | Kantitatif PCR öncesinde izole RNA'dan tamamlayıcı DNA (cDNA) sentezi için kullanılır. |
| RIPA lizis tamponu | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | R0010 | Western blot analizi için hücreleri liz etmek amacıyla kullanılan protein ekstraksiyon tamponu. |
| Seurat | Satija Laboratory | Version 5.0.1 | Tek hücreli RNA-dizileme veri işleme, entegrasyon, kümeleme ve görselleştirme için kullanılan R paketi. |
| survival | CRAN | Version 3.5-7 | Cox orantılı risk modellemesi dahil olmak üzere sağkalım analizi için kullanılan R paketi. |
| SYBR Green qPCR master mix | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | SR1110 | Kantitatif gerçek zamanlı PCR amplifikasyonu için kullanılan floresan master mix. |
| timeROC | CRAN | Version 0.4 | Zamana bağlı alıcı işletim karakteristik eğrileri oluşturmak ve zaman içindeki öngörü performansını hesaplamak için kullanılan R paketi. |
| TRIzol reaktifi | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | Kültür hücrelerinden toplam RNA ekstraksiyonu için kullanılan reaktif. |
| Trypsin-EDTA, 0.25% | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | T1300 | Adherent hücrelerin pasajlanması ve hasadı için kullanılan hücre disosiasyon reaktifi. |
Kaynaklar
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.