Bu çalışma, Yangjing Kapsül'ün siklofosfamid kaynaklı spermatojenik disfonksiyon üzerindeki koruyucu etkilerini değerlendirmekte ve lncRNA NONMMUT031883.2/QKI-5/p38 MAPK sinyal yolunun bu süreçteki rolünü incelemektedir.
Bu içeriği görüntülemek için JoVE aboneliğiniz gereklidir. Giriş yapın veya ücretsiz denemenizi bugün başlatın.
Araştırma makalesi
Yangjing Kapsülü, IncRNA NONMMUT031883.2'yi Yukarı Regüle Ederek QKI-5/p38 MAPK Yolağını İnhibe Etmek Suretiyle Farelerdeki Spermatogenik Disfonksiyonu Hafifletmektedir
Bu makalede
Özet
Özet
Spermatojenik disfonksiyon, erkek infertilitesinin önemli bir nedenidir ve siklofosfamid (CP), anormal spermatogoniyal apoptozu tetikleyerek spermatogenezi bozabilir. Yangjing Kapsülü (YC), reprodüktif fonksiyonu iyileştirmek için kullanılmıştır, ancak temelindeki moleküler mekanizma belirsizliğini korumaktadır. Bu çalışma, CP ile indüklenen bir spermatojenik disfonksiyon fare modelinde ve GC-1 spermatogoniyal hücrelerinde YC'nin koruyucu etkilerini araştırmıştır. Sperm sayısı ve motilitesi, erkek fertilitesi, serum seks hormonu seviyeleri ile testis ve epididimlerdeki histopatolojik değişiklikler değerlendirilmiştir. GC-1 hücrelerinde hücre canlılığı, laktat dehidrogenaz salınımı, apoptoz ve apoptozla ilişkili proteinler analiz edilmiştir. lncRNA NONMMUT031883.2, Quaking-5 (QKI-5) ve p38 mitojenle aktive olan protein kinaz (MAPK) sinyallenmesini incelemek için kantitatif ters transkripsiyon polimeraz zincir reaksiyonu, RNA pull-down analizleri, immünofloresan ve Western blotting yöntemleri kullanılmıştır. YC, CP ile tedavi edilen farelerde sperm kalitesini, serum seks hormonu seviyelerini, reprodüktif organ morfolojisini, testiküler histopatolojiyi ve fertiliteyi doz bağımlı olarak iyileştirmiştir. GC-1 hücrelerinde YC, hücre canlılığını artırmış, hücresel hasarı ve apoptozu azaltmıştır. LncRNA NONMMUT031883.2, QKI-5 ile fiziksel olarak etkileşime girmiş ve YC tedavisi, lncRNA NONMMUT031883.2 ekspresyonunu artırırken QKI-5 ekspresyonunu ve p38 fosforilasyonunu azaltmıştır. YC tedavisi, GC-1 hücrelerinde lncRNA NONMMUT031883.2 knockdown ile indüklenen apoptozu inhibe etmiş, buna karşın QKI-5 aşırı ekspresyonu YC'nin anti-apoptotik etkilerini azaltmıştır. Bu bulgular, YC'nin CP ile indüklenen spermatojenik disfonksiyonu hafiflettiğini ve koruyucu etkilerinin lncRNA NONMMUT031883.2/QKI-5/p38 MAPK yolunun düzenlenmesi aracılığıyla gerçekleştiğini göstermektedir.
Giriş
Spermatojenik disfonksiyon, erkek üreme sistemindeki sperm üretimi, olgunlaşması veya işlevindeki anormalliklerin neden olduğu üreme bozukluğunu ifade eder. Bu durum, azalmış sperm sayısı ve hareketliliği ile artmış sperm deformite oranı ile karakterize edilir1,2. Spermatojenik disfonksiyonun patogenezi karmaşıktır; genetik faktörler, otoimmün bozukluklar, çevresel toksinler, kemoterapi kaynaklı hasarlar ve üreme organı lezyonları ile ilişkilidir3-5. Siklofosfamid (CP) gibi kemoterapötik ilaçlar, testiküler seminifer tübüllere doğrudan zarar verebilir ve spermatogonal apoptozu tetikleyerek erkek spermatojenik disfonksiyonuna katkıda bulunabilir6,7. Klinik müdahaleler olarak günümüzde hormon replasman tedavisi, antioksidan takviyeleri ve yardımcı üreme teknolojileri kullanılmaktadır. Ancak, bu yaklaşımların etkinliği tutarsızdır ve önemli yan etkileri vardır8,9,10. Bu nedenle, güvenli ve etkili müdahalelerin belirlenmesi ve bunların moleküler hedeflerinin netleştirilmesi, spermatojenik disfonksiyonu olan hastalarda fertilite sonuçlarını iyileştirmek açısından klinik olarak önemlidir.
Çin bitkisel tıbbı, çok hedefli özellikleri ve nispeten düşük toksisitesi nedeniyle, erkek üreme fonksiyonlarını koruma ve spermatojenik disfonksiyonu tedavi etme konusunda potansiyel göstermiştir11,12. Yangjing Kapsülü (YC); Rehmannia glutinosa, Epimedium, plasenta, Polygonatum sibiricum, Angelica sinensis ve diğer Çin bitkisel ilaçlarından oluşan geleneksel bir Çin patentli ilacıdır. Böbreği ve özü güçlendirmek, kanı ve iliği beslemek ve üreme fonksiyonunu düzenlemek için kullanılır13. Önceki çalışmalar, YC'nin erkek hayvanlarda seks hormonu seviyelerini düzenleyebildiğini, sperm kalitesini artırabildiğini, testis dokusu hasarını onarabildiğini ve kimyasal maddelerin neden olduğu üreme hasarına karşı koruma sağlayabildiğini göstermiştir14,15. Spermatogonyal hücreler spermatogenezin temelini oluşturur ve anormal spermatogonyal apoptoz, spermatojenik disfonksiyonun gelişiminde merkezi bir olaydır16. YC'nin ayrıca spermatogonyal canlılığı artırdığı, S fazındaki hücre oranını yükselttiği ve apoptozu inhibe ettiği bildirilmiştir17. Ancak, CP kaynaklı spermatojenik disfonksiyondaki koruyucu etkileri ve spesifik moleküler mekanizmaları henüz netlik kazanmamıştır.
Uzun kodlamayan RNA'lar (lncRNA'lar), protein kodlama kapasitesine sahip olmayan 200 nükleotitten daha uzun RNA molekülleridir18. LncRNA'lar; kromozomal susturma, kromatin modifikasyonu, genomik imprinting ve transkripsiyonel aktivasyon dahil olmak üzere çeşitli mekanizmalar aracılığıyla gen ekspresyonunu düzenleyebilirler19,20. RNA-bağlayıcı protein Quaking-5 (QKI-5), aşağı akış genlerinin alternatif eklenmesini (alternative splicing) düzenleyerek hücre proliferasyonu ve apoptoz dahil olmak üzere fizyolojik ve patolojik süreçlerde yer alır21. p38 mitojenle aktive olan protein kinaz (MAPK) yolu, apoptoz düzenlemesinde görev alır ve ayrıca erkek fertilitesi ile testiküler gelişimde önemli bir rol oynar22,23. Önceki bir çalışma, QKI-5 aşırı ekspresyonunun hepatosellüler karsinom hücrelerinde p38 MAPK yolunu aktive ettiğini göstermiştir24. Ek olarak, lncRNA NONMMUT074098.2'nin spermatogonyumlarda QKI-5'e bağlandığı, buna karşın QKI-5 nakavtının p38 MAPK yolunu inhibe ettiği ve spermatogoniyal apoptozu azalttığı gösterilmiştir25. Bu çalışma, YC'nin lncRNA NONMMUT031883.2 ekspresyonunu ve QKI-5/p38 MAPK sinyal eksenini düzenleyip düzenlemediğini, böylece anormal spermatogoniyal apoptozu azaltıp azaltmadığını ve CP kaynaklı spermatojenik disfonksiyonu hafifletip hafifletmediğini araştırmak için CP kaynaklı bir fare spermatojenik disfonksiyon modeli kullanmıştır (Şekil 1). Amaç, YC'nin spermatogenez üzerindeki koruyucu etkilerinin altında yatan moleküler mekanizmayı aydınlatmak ve erkek üreme fonksiyonunu korumadaki farmakolojik rolüne ilişkin anlayışı genişletmektir.
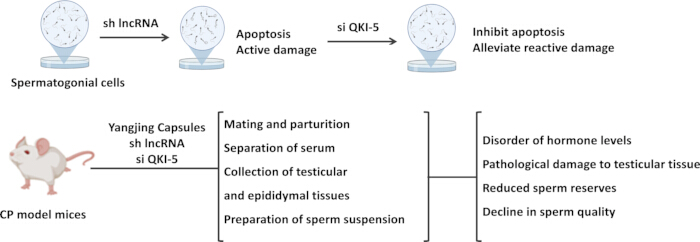
Şekil 1: Deneysel tasarımın şematik diyagramı. Üst panel, GC-1 spermatogonial hücrelerdeki in vitro deneyleri özetlemektedir. Apoptoz ve hücresel hasarı indüklemek için lncRNA NONMMUT031883.2 nakavt (knockdown) işlemi uygulanmış, ardından apoptoz ve hücre hasarı üzerindeki etkilerini değerlendirmek için QKI-5 nakavtı gerçekleştirilmiştir. Alt panel, siklofosfamid (CP)-indüklü fare spermatojenik disfonksiyon modellerindeki in vivo deneyleri özetlemektedir. Farelere Yangjing Kapsül tedavisi ve/veya lncRNA NONMMUT031883.2 veya QKI-5 müdahalesi uygulanmıştır. Ardından fertilite, serum hormon seviyeleri, testis ve epididim dokuları, sperm süspansiyonu, sperm rezervleri, sperm kalitesi ve testis histopatolojik hasarı değerlendirilmiştir. Bu şeklin daha büyük bir versiyonunu görüntülemek için lütfen buraya tıklayın.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Protokol
Tüm hayvan deneyleri, ARRIVE kılavuzlarına ve National Institutes of Health Laboratuvar Hayvanlarının Bakımı ve Kullanımı Kılavuzu'na uygun olarak gerçekleştirilmiştir. Tüm deneysel protokoller, Southeast University Hayvan Etik Komitesi tarafından incelenmiş ve onaylanmıştır (onay no. 20230216022).
1. YC içeren serumun hazırlanması
İki adet Yangjing Kapsülü (YC; kapsül başına 0.5 g) açıldı ve kapsül içeriğinden 0.8 g tartıldı. Final hacim 10 mL olacak şekilde normal salin eklendi ve 80 mg/mL'lik bir süspansiyon hazırlamak için karışım iyice vortekslendi. 22–25 g ağırlığında ve 8 haftalık, spesifik patojen taşımayan erkek BALB/c fareler; 22 °C sıcaklıkta, %55–60 nemde, 12 saatlik ışık/karanlık döngüsünde, yem ve suya ad libitum erişim sağlanarak beslendi. 1 haftalık aklimatizasyon süresinin ardından farelere, 5 ardışık gün boyunca günde bir kez, 10 mL/kg hacimde, vücut ağırlığı başına 800 mg dozunda oral gavaj yoluyla YC verildi. Son uygulamadan iki saat sonra fareler, intraperitonal %1 sodyum pentobarbital ile anestezi altına alındı ve YC içeren serum hazırlamak için kan örnekleri toplandı. Serum 56 °C'de 30 dakika boyunca inaktive edildi, 0.22 µm'lik bir membrandan süzüldü ve kullanıma kadar −80 °C'de saklandı.
2. Hücre kültürü ve transfeksiyon
Fare GC-1 spermatogonyal hücreleri, %1 penisilin-streptomisin ve %10 fetal sığır serumu içeren DMEM içerisinde kültüre edildi. Tüm kültürler, %5 CO₂ (v/v) içeren bir atmosferde 37 °C'de tutuldu.
LncRNA-spesifik kısa saç tokası RNA (sh-lncRNA), bir QKI-5 aşırı ekspresyon plazmidi (OE-QKI-5), QKI-5 küçükleterek girişim yapan RNA (si-QKI-5) ve bunlara karşılık gelen negatif kontrolleri (sh-NC, OE-NC ve si-NC) sentezlenmiş ve oluşturulmuştur. GC-1 hücreleri, transfeksiyon reaktifi talimatlarına uygun olarak sh-lncRNA veya sh-NC, si-QKI-5 veya si-NC ya da OE-QKI-5 veya OE-NC ile transfekte edilmiştir. 48 saatlik inkübasyonun ardından, transfeksiyon verimliliği lncRNA NONMMUT031883.2 veya QKI-5 ekspresyonu ölçülerek değerlendirilmiştir.
sh-lncRNA + si-QKI-5 + etoposide grubu için, GC-1 hücreleri sh-lncRNA ve si-QKI-5 ile transfekte edilmiş ve ardından 12 saat boyunca 100 µM etoposide ile işleme tabi tutulmuştur26. Sonraki hücre canlılığı analizleri için, GC-1 hücreleri %5, %10 veya %20 YC içeren serum ile takviye edilmiş ortamda kültüre edilmiş ve sırasıyla düşük doz YC (L-YC), orta doz YC (M-YC) ve yüksek doz YC (H-YC) grupları olarak belirlenmiştir. YC içeren serum konsantrasyonları (%5, %10 ve %20 YC), öncül konsantrasyon gradyanı deneylerinin sonuçlarına göre belirlenmiştir. sh-lncRNA + H-YC + OE-NC ve sh-lncRNA + H-YC + OE-QKI-5 grupları için, GC-1 hücreleri 48 saat boyunca sh-lncRNA artı OE-NC veya sh-lncRNA artı OE-QKI-5 ile transfekte edilmiş ve ardından 24 saat boyunca %20 YC içeren seruma maruz bırakılmıştır.
3. Cell Counting Kit-8 deneyi
GC-1 hücreleri, 96 kuyucuklu plaklara kuyucuk başına 5 × 10³ hücre olacak şekilde ekilmiş ve 24 saat boyunca kültüre edilmiştir. Hücre tutunmasını takiben, orijinal besiyeri YC içeren serum ile takviye edilmiş 100 µL tam besiyeri ile değiştirilmiş ve hücreler 6, 12 veya 24 saat boyunca inkübe edilmiştir. İnkübasyonun ardından, her kuyucuğa 10 µL Cell Counting Kit-8 reaktifi eklenmiş ve hücreler 37 °C'de, karanlıkta 2 saat boyunca inkübe edilmiştir. 450 nm'deki absorbans, bir mikroplaka okuyucu kullanılarak ölçülmüştür.
4. Laktat dehidrogenaz testi
sh-NC veya sh-lncRNA ile 48 saatlik transfeksiyondan sonra, GC-1 hücre kültür ortamı toplandı ve santrifüj ile süpernatant elde edildi. Laktat dehidrogenaz test kiti talimatlarına uygun olarak, süpernatant tespit çalışma çözeltisi ile nazikçe karıştırıldı ve 96 kuyucuklu bir plakaya aktarıldı. Plaka 25 °C'de, karanlıkta 30 dakika inkübe edildi. Bir mikroplaka okuyucu kullanılarak 490 nm'deki absorbans ölçüldü ve hücre hasarını değerlendirmek için laktat dehidrogenaz salınımı hesaplandı.
5. Calcein AM/propidium iyodür boyama
sh-NC veya sh-lncRNA ile 48 saatlik transfeksiyondan sonra, GC-1 hücre sağkalımı Calcein AM/propidium iyodür (PI) boyama kullanılarak değerlendirildi. Hücreler, 12 kuyucuklu plakalara kuyucuk başına 5 × 10⁴ hücre olacak şekilde ekildi ve %60–70 konfluansa ulaşana kadar kültüre edildi. Hücreler fosfat tamponlu salin ile nazikçe durulandı ve her kuyucuğa 500 µL Calcein AM/PI boyama çözeltisi eklendi. Hücreler 37 °C'de karanlıkta 30 dakika inkübe edildi ve floresan mikroskobu altında gözlemlendi. Canlı ve ölü hücreler görüntü analiz yazılımı kullanılarak sayıldı ve sağkalan hücrelerin oranı hesaplandı.
6. Akış sitometrisi
GC-1 hücreleri santrifüj ile toplandı ve fosfat tamponlu salin ile nazikçe durulandı. Hücre peleti, 5 × 10⁵ hücre/mL yoğunlukta 500 µL bağlanma tamponunda yeniden süspanse edildi. Ardından 5 µL'şer Annexin V-APC ve PI eklendi, süspansiyon iyice karıştırıldı ve 25 °C'de karanlıkta 10 dk inkübe edildi. Apoptoz, APC için 633/660 nm ve PI için 488/630 nm eksitasyon/emisyon dalga boyları kullanılarak akış sitometrisi ile analiz edildi. Apoptoz oranı, akış sitometrisi analiz yazılımı kullanılarak değerlendirildi.
7. Caspase-3 aktivite analizi
Belirtilen işlemlerden sonra, yaklaşık 1 × 10⁶ GC-1 hücresi toplandı, durulandı ve fosfat tamponlu salin içerisinde yeniden süspanse edildi. Hücreler, caspase-3 aktivite analiz kiti içerisindeki 100 µL reaktif II ile karıştırıldı ve buz üzerinde 15 dk boyunca liz edildi. Santrifüjasyonun ardından, lizat süpernatantından 50 µL toplandı ve 40 µL reaktif I ile 10 µL reaktif III ile karıştırıldı. Karışım, 37 °C'de 2 sa boyunca inkübe edildi. 405 nm'deki absorbans bir mikroplaka okuyucu kullanılarak ölçüldü ve caspase-3 aktivitesi kit talimatlarına göre değerlendirildi.
8. RNA pull-down deneyi
lncRNA NONMMUT031883.2'nin sense ve antisense zincirleri, ilgili dizilime göre sentezlenmiş ve biotin ile işaretlenmiştir. Hücreler, buz üzerinde 30 dk boyunca immünopresipitasyon hücre lizis tamponunda lizize edilmiş ve protein içeren süpernatan santrifüjle toplanmıştır. Streptavidin manyetik boncuklar, RNA bağlama tamponu ile üç kez yıkanmış ve %1 sığır serum albümini içeren bağlama tamponunda 30 dk boyunca inkübe edilmiştir.
Ön işlemden geçirilmiş boncuklar, biotin işaretli problarla birleştirildi ve 25 °C'de 30 dk inkübe edildi. Bağlanmayan problar manyetik ayrıştırma ile uzaklaştırıldı. Ardından hücre lizat süpernatanı eklendi ve manyetik boncuk-RNA-protein kompleksleri oluşturmak için karışım 4 °C'de 4 sa boyunca inkübe edildi. Spesifik olmayan şekilde bağlanan proteinleri uzaklaştırmak için manyetik boncuklar yıkama tamponu ile üç kez yıkandı. Yıkama tamponu manyetik ayrıştırma ile uzaklaştırıldı ve 2× SDS örnek yükleme tamponu eklendi. Örnekler 95 °C'de 10 dk ısıtıldı ve sonraki Western blot analizi için süpernatan manyetik ayrıştırma ile toplandı.
9. Spermatojenik disfonksiyon fare modelinin oluşturulması
5 günlük alıştırma sürecinin ardından, spermatojenik disfonksiyon modeli oluşturmak için 22–25 g ağırlığında ve 8 haftalık, spesifik patojen taşımayan erkek BALB/c farelere 7 gün boyunca günde bir kez 50 mg/kg dozunda intraperitonal olarak siklofosfamid (CP) uygulanmıştır14,27. Başarıyla modelleme yapılan fareler, rastgele sayı tablosu kullanılarak CP, 200 mg/kg YC, 400 mg/kg YC, 800 mg/kg YC, 800 mg/kg YC + sh-NC ve 800 mg/kg YC + sh-lncRNA gruplarına her grupta altı fare olacak şekilde rastgele atanmıştır.
YC ile tedavi edilen gruplardaki farelere, 30 gün boyunca günde bir kez oral gavaj yoluyla ilgili dozda YC verilmiştir13. 800 mg/kg YC + sh-NC ve 800 mg/kg YC + sh-lncRNA grupları için, model başarıyla oluşturulduktan sonra fareler %2 izofluran inhalasyonu ile anestezi altına alınmıştır. Her farenin ayak çekme refleksinin kaybolduğu ve solunum hızının stabil olduğu onaylandıktan sonra, cerrahi bölge tıraş edilmiş ve povidon-iyod ile dezenfekte edilmiştir. Aseptik koşullar altında, genital bölgenin önünden deri ve vücut duvarı boyunca ventral orta hat insizyonu yapılmıştır. Vasküler hasardan kaçınmaya özen gösterilerek, epididimal yağ yastığı dikkatle manipüle edilerek testis açığa çıkarılmıştır. Bir mikromanipülatör kullanılarak seminifer tübüller görüntülenmiş ve bir mikroenjeksiyon iğnesi kullanılarak 1 µL adenoviral süspansiyon (1 × 10¹⁰ TU/mL) yavaşça enjekte edilmiştir28. İğne, enjeksiyondan sonra 5 dakika boyunca yerinde bırakılmış ve ardından yavaşça geri çekilmiş, hemostaz ise steril bir pamuklu çubukla sağlanmıştır. Aynı prosedür daha sonra karşı taraftaki testise uygulanmıştır. Ardından insizyon dikilmiş ve farelerin ameliyat sonrası ısıtma pedi üzerinde iyileşmesine izin verilmiştir. Kontrol farelerine günlük olarak gavaj ve enjeksiyon yoluyla eşit hacimde salin solüsyonu verilmiştir.
10. Fertilite değerlendirmesi
İlaç uygulaması tamamlandıktan sonra, her gruptaki erkek fareler 1:2 oranında dişi BALB/c fareleri ile 7 gün boyunca serbestçe çiftleştirilmiştir. Dişi farelerde vajinal tıkaç oluşumu günlük olarak izlenmiş ve kaydedilmiştir. Başarılı çiftleşme onaylandıktan sonra erkek fareler uzaklaştırılmış ve dişi fareler doğal doğum gerçekleşene kadar ayrı ayrı barındırılmıştır. Grup başına dokuz gebe dişi fare elde edilmiş ve analize dahil edilmiştir. Her gruptaki erkek fertiliteyi değerlendirmek için ortalama batın büyüklüğü kaydedilmiştir.
Deney süresinin sonunda fareler, 100 mg/kg dozunda intraperitoneal pentobarbital sodyum uygulanarak ötanize edildi. Bu ötanazi yöntemi, Southeast Üniversitesi Hayvan Etik Komitesi tarafından onaylanmıştır (onay no. 20230216022). Testisler ve epididimler dikkatlice ayrıldı, fotoğrafları çekildi ve tartıldı. Testis ve epididim indeksleri, organ ağırlığı/vücut ağırlığı olarak hesaplandı. Her fareden bir epididim toplandı, parçalara bölündü, 1 mL önceden ısıtılmış fosfat tamponlu salin (37 °C) içine yerleştirildi ve spermlerin dışarı çıkmasına izin vermek için 20 dk inkübe edildi29. Sperm süspansiyonu nazikçe karıştırıldı ve 10 µL sperm süspansiyonu önceden ısıtılmış bir kan hücresi sayım lamı üzerine yerleştirildi. Spermler, ışık mikroskobu altında 200× büyütmede manuel olarak sayıldı ve sonuçlar 106/L olarak ifade edildi. Ayrıca, toplam spermatozoon sayısına oranla progresif hareketli spermatozoonların yüzdesi, sperm motilitesi olarak hesaplandı13.
11. Seks hormonu düzeylerinin belirlenmesi
Her gruptaki farelerin orbital veninden kan toplandı ve 25 °C'de 30 dk boyunca bekletildi. Serum, 3.000 × g'de 10 dk santrifüj edilerek toplandı30. Serum testosteron, luteinizan hormon (LH) ve folikül uyarıcı hormon (FSH) düzeyleri, ilgili enzimle bağlanan immünosorbent assay kitleri kullanılarak ölçüldü.
12. RNA stabilitesi analizi
GC-1 hücreleri 96 kuyucuklu kültür plaklarına ekilmiş, si-QKI-5 veya si-NC ile transfekte edilmiş ve 48 saat boyunca kültüre edilmişti. Ardından 5 µg/mL konsantrasyonda Aktinomisin D eklenmiş ve hücreler 0, 3, 6 ve 9. saatlerde toplanmıştı. Toplam RNA izole edilmiş ve ters transkripsiyonu takiben kantitatif ters transkripsiyon polimeraz zincir reaksiyonu ile lncRNA NONMMUT031883.2'nin bağıl ekspresyon düzeyi belirlenmişti. Her bir zaman noktasındaki bağıl RNA düzeyi, 0. saatteki ekspresyon düzeyi %100 kabul edilerek hesaplanmıştı.
13. Kantitatif ters transkripsiyon polimeraz zincir reaksiyonu
GC-1 hücreleri ve fare testis dokuları fosfat tamponlu salin ile durulandı ve toplam RNA izolasyonu için lizlendi. AMV ters transkriptaz kullanılarak ters transkripsiyon ile tamamlayıcı DNA üretildi. Amplifikasyon şablonu olarak tamamlayıcı DNA kullanılarak, gerçek zamanlı PCR sistemi ve kantitatif PCR kiti ile polimeraz zincir reaksiyonu amplifikasyonu gerçekleştirildi. lncRNA NONMMUT031883.2 için iç referans olarak U6, QKI-5 için ise iç referans olarak GAPDH kullanıldı. Göreceli hedef gen ekspresyonu 2−ΔΔCt yöntemi kullanılarak hesaplandı25. lncRNA NONMMUT031883.2'nin hücre altı lokalizasyonunu belirlemek için RNA ayrıca sitoplazmik ve nükleer fraksiyonlardan ayrı ayrı izole edildi. Primer dizileri Tablo 1'de verilmiştir.
| Gen | İleri primer (5' - 3') | Ters primer (5' - 3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | GATGGACACGCATATCGTG |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| U6 RNA | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
Tablo 1: Kantitatif ters transkripsiyon polimeraz zincir reaksiyonu için kullanılan primer dizileri. lncRNA NONMMUT031883.2, QKI-5, U6 ve GAPDH için ileri ve geri primer dizileri 5′–3′ yönünde listelenmiştir.
14. Hematoksilin ve eozin boyama
Fare testis ve epididim dokuları %4 paraformaldehit içerisine daldırılmış ve 4 °C'de 24 sa boyunca fikse edilmiştir. Fosfat tamponlu salin ile durulandıktan sonra dokular, dereceli etanol serisi ileydehidre edilmiş, parafine gömülmüş ve 5 µm kalınlığında kesitler alınmıştır. Kesitler 60 °C'de 60 dk ısıtılmış ve ksilen içinde 30 dk boyunca dewaks edilmiştir.
Kademeli etanol serisi ile hidratasyonun ardından, kesitler 5 dk boyunca hematoksilen ile boyanmış, 10 sn boyunca hidroklorik asit-etanol diferansiyasyon çözeltisi ile işleme tabi tutulmuş, mavileştirme için musluk suyu ile yıkanmış ve 2 dk boyunca %1 eosin ile boyanmıştır. Kesitler daha sonra %95 etanol ve absolut etanol iley dehidrate edilmiş ve 30 dk boyunca ksilen ile şeffaflaştırılmıştır. Hava ile kurutmanın ardından kesitler nötr gum ile lam üzerine monte edilmiştir. Testis ve epididimlerdeki morfolojik değişiklikler mikroskop altında gözlemlenmiştir.
15. İmmünofloresan
Fare testis parafin kesitleri, dereceli bir etanol serisi ile dewaks ve hidratasyon işlemlerinden geçirilmiş, ardından pH 6.0 sitrat tamponunda mikrodalga yardımıyla antijen geri kazanımı uygulanmıştır. Kesitler oda sıcaklığına kendiliğinden soğuduktan sonra %0.3 Triton X-100 ile 10 dk inkübe edilmiştir. Kesitler, 25 °C'de 60 dk boyunca %5 sığır serum albümini ile bloke edilmiş, fosfat tamponlu salin ile durulanmış ve Ki67'ye karşı bir primer antikor ile 4 °C'de gece boyunca inkübe edilmiştir. Ertesi gün, florokrom işaretli bir sekonder immünoglobulin G antikoru uygulanmış ve kesitler 37 °C'de karanlıkta 60 dk inkübe edilmiştir. Fosfat tamponlu salin ile durulamanın ardından, kesitler 10 dk boyunca DAPI ile karşıt boyanmış ve floresan mikroskobu altında incelenmiştir. Floresan yoğunluğu, görüntü analiz yazılımı kullanılarak analiz edilmiştir.
GC-1 hücrelerinin immunofloresan boyaması için, hücreler 12 kuyucuklu plakalara kuyucuk başına 1 × 10⁵ hücre olacak şekilde ekilmiş ve 24 sa boyunca inkübe edilmiştir. Hücreler %4 paraformaldehit ile 30 dk sabitlenmiş, %0,3 Triton X-100 ile 10 dk permeabilize edilmiş, %5 sığır serum albümini ile bloke edilmiş ve QKI-5'e karşı bir primer antikor ile 4 °C'de gece boyunca inkübe edilmiştir. Geri kalan prosedür, testis doku kesitleri için tanımlandığı şekilde gerçekleştirilmiştir.
16. TUNEL boyama
Fare testis parafin kesitleri deparafine edildi, dereceli etanol serisi ile hidrate edildi ve hücre membranı geçirgenliğini artırmak için %0.1 Triton X-100 ile 5 dk inkübe edildi. DNase içermeyen 20 µg/mL konsantrasyonundaki Proteinaz K çalışma çözeltisi kesitlere homojen şekilde uygulandı ve ardından kesitler 37 °C'de 15 dk inkübe edildi. TUNEL tespit çözeltisi eklendi ve kesitler karanlıkta 37 °C'de 90 dk inkübe edildi. DAPI ile 10 dk inkübasyonun ardından, solmayı önleyici (antifade) kapatma medyumu uygulandı ve testis dokusu floresan mikroskobu altında gözlemlendi.
GC-1 hücreleri 12 kuyucuklu plakalara ekildi ve %4 paraformaldehit ile 30 dk boyunca fikse edildi. %0,1 Triton X-100 ile 5 dk boyunca permeabilizasyon işleminden sonra, hücrelere TUNEL tespit solüsyonu uygulandı ve ardından 60 dk boyunca karanlıkta inkübasyona bırakıldı. Hücreler daha sonra 10 dk boyunca DAPI ile boyandı ve floresan mikroskobu altında gözlemlendi.
17. Western blotting
Fare testis dokuları ve GC-1 hücreleri, buz üzerinde 30 dk boyunca immünopresipitasyon hücre lizis tamponu ile lize edilmiş ve ultrasonikasyonla parçalanmıştır. Santrifüjden sonra, protein içeren süpernatan toplanmış ve protein konsantrasyonu bir bisinkoninik asit analiz kiti kullanılarak belirlenmiştir. Protein süpernatanı SDS yükleme tamponu ile karıştırılmış ve kaynar suda 10 dk boyunca ısıtılmıştır. Jel elektroforezi ile ayrıştırmanın ardından, proteinler poliviniliden florür membranlara aktarılmış ve %5 sığır serum albümini ile 2 sa boyunca bloklanmıştır31.
Membranlar cleaved caspase-3 (1:500), Bcl-2 (1:1000), caspase-3 (1:2000), Bax (1:500), QKI-5 (1:1000), fosforile p38 (1:1000) veya p38 (1:500) karşıtı primer antikorlarla 4 °C'de gece boyunca inkübe edildi. Ertesi gün membranlar, Tween 20 içeren Tris-tamponlu salin ile durulandı ve 1:10000 oranında keçi anti-tavşan immünoglobulin G ile 25 °C'de 2 sa boyunca inkübe edildi. Membran yüzeyine geliştirilmiş kemilüminesans çalışma çözeltisi uygulandı ve protein bantları bir jel görüntüleme sistemi ile görüntülendi. Bant yoğunluğu görüntü analiz yazılımı kullanılarak analiz edildi ve göreceli protein ekspresyonu GAPDH (1:3000) ile normalize edildi.
Protein sentezini inhibe etmek için 50 µg/mL konsantrasyonda sikloheksimid kullanılmıştır. QKI-5'in yarı ömrünü belirlemek için hücreler 0, 3, 6 ve 9. saatlerde toplanmış ve ardından QKI-5 protein seviyeleri Western blotting ile belirlenmiştir25.
18. İstatistiksel analiz
Tüm veriler istatistiksel, grafikleme ve görüntü analiz yazılımları kullanılarak istatistiksel olarak analiz edilmiş ve grafiğe dökülmüştür. Verilerin normalliğini değerlendirmek için Shapiro-Wilk testi kullanılmıştır. Deneysel veriler ortalama ± standart sapma olarak sunulmuştur. Gruplar arasındaki farkları değerlendirmek için tek yönlü varyans analizi kullanılmıştır. Varyanslar homojen olduğunda post hoc ikili karşılaştırmalar için LSD-t testi, varyanslar heterojen olduğunda ise Dunnett’s T3 testi kullanılmıştır. p < 0.05 değeri istatistiksel olarak anlamlı kabul edilmiştir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Sonuçlar
lncRNA NONMMUT031883.2 nakavdownu spermatogonial apoptozu indükler
lncRNA NONMMUT031883.2 ekspresyonunu nakdown etmek için GC-1 hücreleri sh-lncRNA ile transfekte edildi. sh-NC transfekte edilen hücrelerle karşılaştırıldığında, sh-lncRNA transfeksiyonu sonrası lncRNA NONMMUT031883.2'nin transkripsiyonel düzeyi belirgin şekilde azalmış olup başarılı nakdown doğrulanmıştır (Şekil 2A). lncRNA NONMMUT031883.2 nakdownu sonrası, GC-1 hücre canlılığı önemli ölçüde azalmış (
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Tartışma
Kemoterapi kaynaklı edinilmiş spermatojenik disfonksiyon, erkek kısırlığının önemli bir nedenidir32,33,34. Ancak, spesifik moleküler mekanizmalar henüz tam olarak anlaşılamamıştır. Bu çalışmanın bulguları, Yangjing Kapsülü'nün (YC), siklofosfamid (CP) kaynaklı seks hormonu anomalilerini, testiküler histopatolojik hasarı ve erkek farelerdeki fertilite bozukluğunu doz bağımlı olarak iyileştirdiğini göstermektedir. Bu iyileşmeler, ...
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Açıklamalar
Yazarlar, finansal veya finansal olmayan herhangi bir çıkar çatışması olmadığını beyan ederler.
Teşekkürler
Bu çalışma, Çin Ulusal Doğa Bilimleri Vakfı (hibe no. 82374257), Jiangsu Geleneksel Çin Tıbbı Eyalet Hastanesi'nin Dördüncü Dönem Tepe Akademik Yetenek Eğitim Programı (hibe no. k2026yrc74) ve Jiangsu Eyaleti Geleneksel Çin Tıbbı ve Entegre Geleneksel Çin ve Batı Tıbbı Bilimsel Araştırma Projeleri (hibe no. CYTF2026019) tarafından desteklenmiştir.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.
Malzemeler
| Ad | Şirket | Katalog numarası | Yorumlar |
|---|---|---|---|
| Actinomycin D | MedChemExpress, Monmouth Junction, NJ, USA | HY-17559 | RNA stabilitesi assayleri için kullanılan transkripsiyon inhibitörü |
| AMV ters transkriptaz | Takara, Tokyo, Japonya | 2621 | Komplementer DNA sentezi için enzim |
| Annexin V-APC/PI saptama kiti | BioLab Technology, Pekin, Çin | KFS191 | Apoptozun akış sitometrik analizi için kit |
| Antifade kapatma medyumu | MedChemExpress, Monmouth Junction, NJ, USA | HY-K1042 | Floresans koruması için kapatma medyumu |
| Bax birincil antikoru | Affinity Biosciences, OH, USA | AF0120 | Bax saptaması için birincil antikor |
| BCA kiti | Macklin, Şanghay, Çin | B917925 | Protein konsantrasyonu tayini için kit |
| Bcl-2 birincil antikoru | Affinity Biosciences, OH, USA | AF0769 | Bcl-2 saptaması için birincil antikor |
| Sığır serum albümini | BioLab Technology, Pekin, Çin | BTN131070 | Bloklama reaktifi |
| Calcein/PI saptama kiti | Beyotime, Şanghay, Çin | C2015M | Canlı/ölü hücre boyama kiti |
| Kaspaz-3 aktivite assay kiti | BioLab Technology, Pekin, Çin | QN2866 | Kaspaz-3 aktivitesini ölçmek için kit |
| Kaspaz-3 birincil antikoru | Abcam, MA, USA | ab184787 | Kaspaz-3 saptaması için birincil antikor |
| CCK-8 reaktifi | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0301 | Hücre canlılığı değerlendirmesi için reaktif |
| Kesilmiş kaspaz-3 birincil antikoru | Abcam, MA, USA | ab32042 | Kesilmiş kaspaz-3 saptaması için birincil antikor |
| Sikloheksimid | Macklin, Şanghay, Çin | H823111 | Protein stabilitesi assayleri için kullanılan protein sentez inhibitörü |
| Siklofosfamid | MedChemExpress, Monmouth Junction, NJ, USA | HY-17420 | Spermatojenik disfonksiyon oluşturmak için kullanılır |
| DAPI reaktifi | Beyotime, Şanghay, Çin | C1006 | Nükleer karşıt boya |
| DMEM medyumu | Wuhan Sunncell Biotechnology, Hubei, Çin | SNLM-302 | GC-1 hücreleri için hücre kültürü medyumu |
| ECL çalışma çözeltisi | Solarbio, Pekin, Çin | SW2030 | Protein bandı saptaması için kemilüminesans substrat |
| Etoposid | MedChemExpress, Monmouth Junction, NJ, USA | HY-13629 | Apoptoz indükleyici ajan |
| Akış sitometresi | BD Biosciences, CA, USA | BD FACSCalibur | Apoptoz analizi için cihaz |
| FlowJo yazılımı | BD Biosciences, CA, USA | v10.8 | Akış sitometrisi veri analizi için yazılım |
| Floresans mikroskobu | Leica, Heidelberg, Almanya | DM3000 | Floresans görüntüleme için cihaz |
| Floresans işaretli ikincil antikor IgG | Servicebio, Wuhan, Çin | GB22303 | İmmünofloresans saptaması için ikincil antikor |
| Folikül uyarıcı hormon ELISA kiti | Huamei Biotech, Wuhan, Çin | CSB-E06871m | Serum folikül uyarıcı hormonunu ölçmek için kit |
| GAPDH birincil antikoru | Affinity Biosciences, OH, USA | T0004 | Western blotting için yükleme kontrol antikoru |
| GC-1 hücreleri | Wuhan Sunncell Biotechnology, Hubei, Çin | SNL-302 | Fare spermatogonial hücre hattı |
| Jel görüntüleme sistemi | Jinpeng Analysis Instrument, Şanghay, Çin | JP-2880 | Jel ve blot görselleştirme için görüntüleme sistemi |
| Jel görüntüleme sistemi | Invitrogen, Carlsbad, CA, USA | iBright CL1500 | Western blotlar için kemilüminesans görüntüleme sistemi |
| Keçi anti-tavşan IgG | Servicebio, Wuhan, Çin | GB23303 | Western blotting için ikincil antikor |
| Hematoksilin çözeltisi | BioLab Technology, Pekin, Çin | YT165 | Histolojik analiz için nükleer boya |
| Hidroklorik asit etanol diferansiyasyon çözeltisi | Beyotime, Şanghay, Çin | C0163S | Hematoksilin boyama için diferansiyasyon reaktifi |
| ImageJ yazılımı | National Institutes of Health, USA | 1.54h | Görüntü kantifikasyonu için yazılım |
| IP hücre lizis tamponu | Beyotime, Şanghay, Çin | P0013 | İmmünopresipitasyon ve protein ekstraksiyonu için lizis tamponu |
| Ki67 birincil antikoru | Affinity Biosciences, OH, USA | AF0198 | Ki67 saptaması için birincil antikor |
| LDH Sitotoksisite Assay Kiti | Beyotime, Şanghay, Çin | C0016 | Laktat dehidrogenaz salınımını ve hücresel hasarı ölçmek için kit |
| Işık mikroskobu | Olympus, Tokyo, Japonya | CKX53 | Sperm sayımı ve morfolojik gözlem için kullanılır |
| Lipofectamine 3000 | Invitrogen, Carlsbad, CA, USA | L3000001 | Transfeksiyon reaktifi |
| Mikroplaka okuyucu | Molecular Devices, CA, USA | SpectraMax Mini | Absorbans ölçümleri için cihaz |
| Fare luteinizan hormon ELISA kiti | Huamei Biotech, Wuhan, Çin | CSB-E12770m | Serum luteinizan hormonunu ölçmek için kit |
| Fare testosteron ELISA kiti | Huamei Biotech, Wuhan, Çin | CSB-E05101m | Serum testosteronunu ölçmek için kit |
| Nötr zamk | BioLab Technology, Pekin, Çin | QN1253 | Histolojik kesitler için kapatma medyumu |
| p38 birincil antikoru | Affinity Biosciences, OH, USA | AF6456 | Toplam p38 saptaması için birincil antikor |
| Paraformaldehit | MedChemExpress, Monmouth Junction, NJ, USA | HY-Y0333 | Hücreler ve dokular için tespit edici |
| PARIS kiti | Invitrogen, Carlsbad, CA, USA | AM1921 | Nükleer ve sitoplazmik RNA fraksiyonlaması için kit |
| PCR sistemi | ABI, CA, USA | ABI PRISM 7300 | Real-time PCR cihazı |
| p-p38 birincil antikoru | Affinity Biosciences, OH, USA | AF3455 | Fosforile p38 saptaması için birincil antikor |
| Proteinaz K çözeltisi | Beyotime, Şanghay, Çin | ST532 | TUNEL boyama öncesi doku permeabilizasyonu için reaktif |
| PVDF membranlar | Millipore, MA, USA | ISEQ00010 | Western blottingde protein transferi için membranlar |
| QKI-5 birincil antikoru | Abcam, MA, USA | ab126742 | QKI-5 saptaması için birincil antikor |
| RNA bağlanma tamponu | Invitrogen, Carlsbad, CA, USA | 65040D | RNA-protein bağlanma reaksiyonları için tampon |
| SDS yükleme tamponu | Beyotime, Şanghay, Çin | P0286 | SDS-PAGE için örnek yükleme tamponu |
| Streptavidin manyetik boncuklar | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0208 | Biotin işaretli RNA problarının yakalanması için manyetik boncuklar |
| TB Green FAST qPCR Kiti | Takara, Tokyo, Japonya | CN830S | Kantitatif PCR için reaktif kiti |
| Triton X-100 | Macklin, Şanghay, Çin | T824275 | Permeabilizasyon reaktifi |
| TRIzol reaktifi | Invitrogen, Carlsbad, CA, USA | 15596018CN | Toplam RNA ekstraksiyonu için reaktif |
| TUNEL saptama çözeltisi | Beyotime, Şanghay, Çin | C1086 | DNA fragmantasyonunun saptanması için reaktif |
| Ksilen | Macklin, Şanghay, Çin | X821391 | Parafin giderme ve doku şeffaflaştırma için reaktif |
Kaynaklar
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
Erişim kısıtlı. Bu içeriği görüntülemek için lütfen giriş yapın veya deneme sürümünü başlatın.